
Jadalny

Dopuszczony do obrotu
Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.


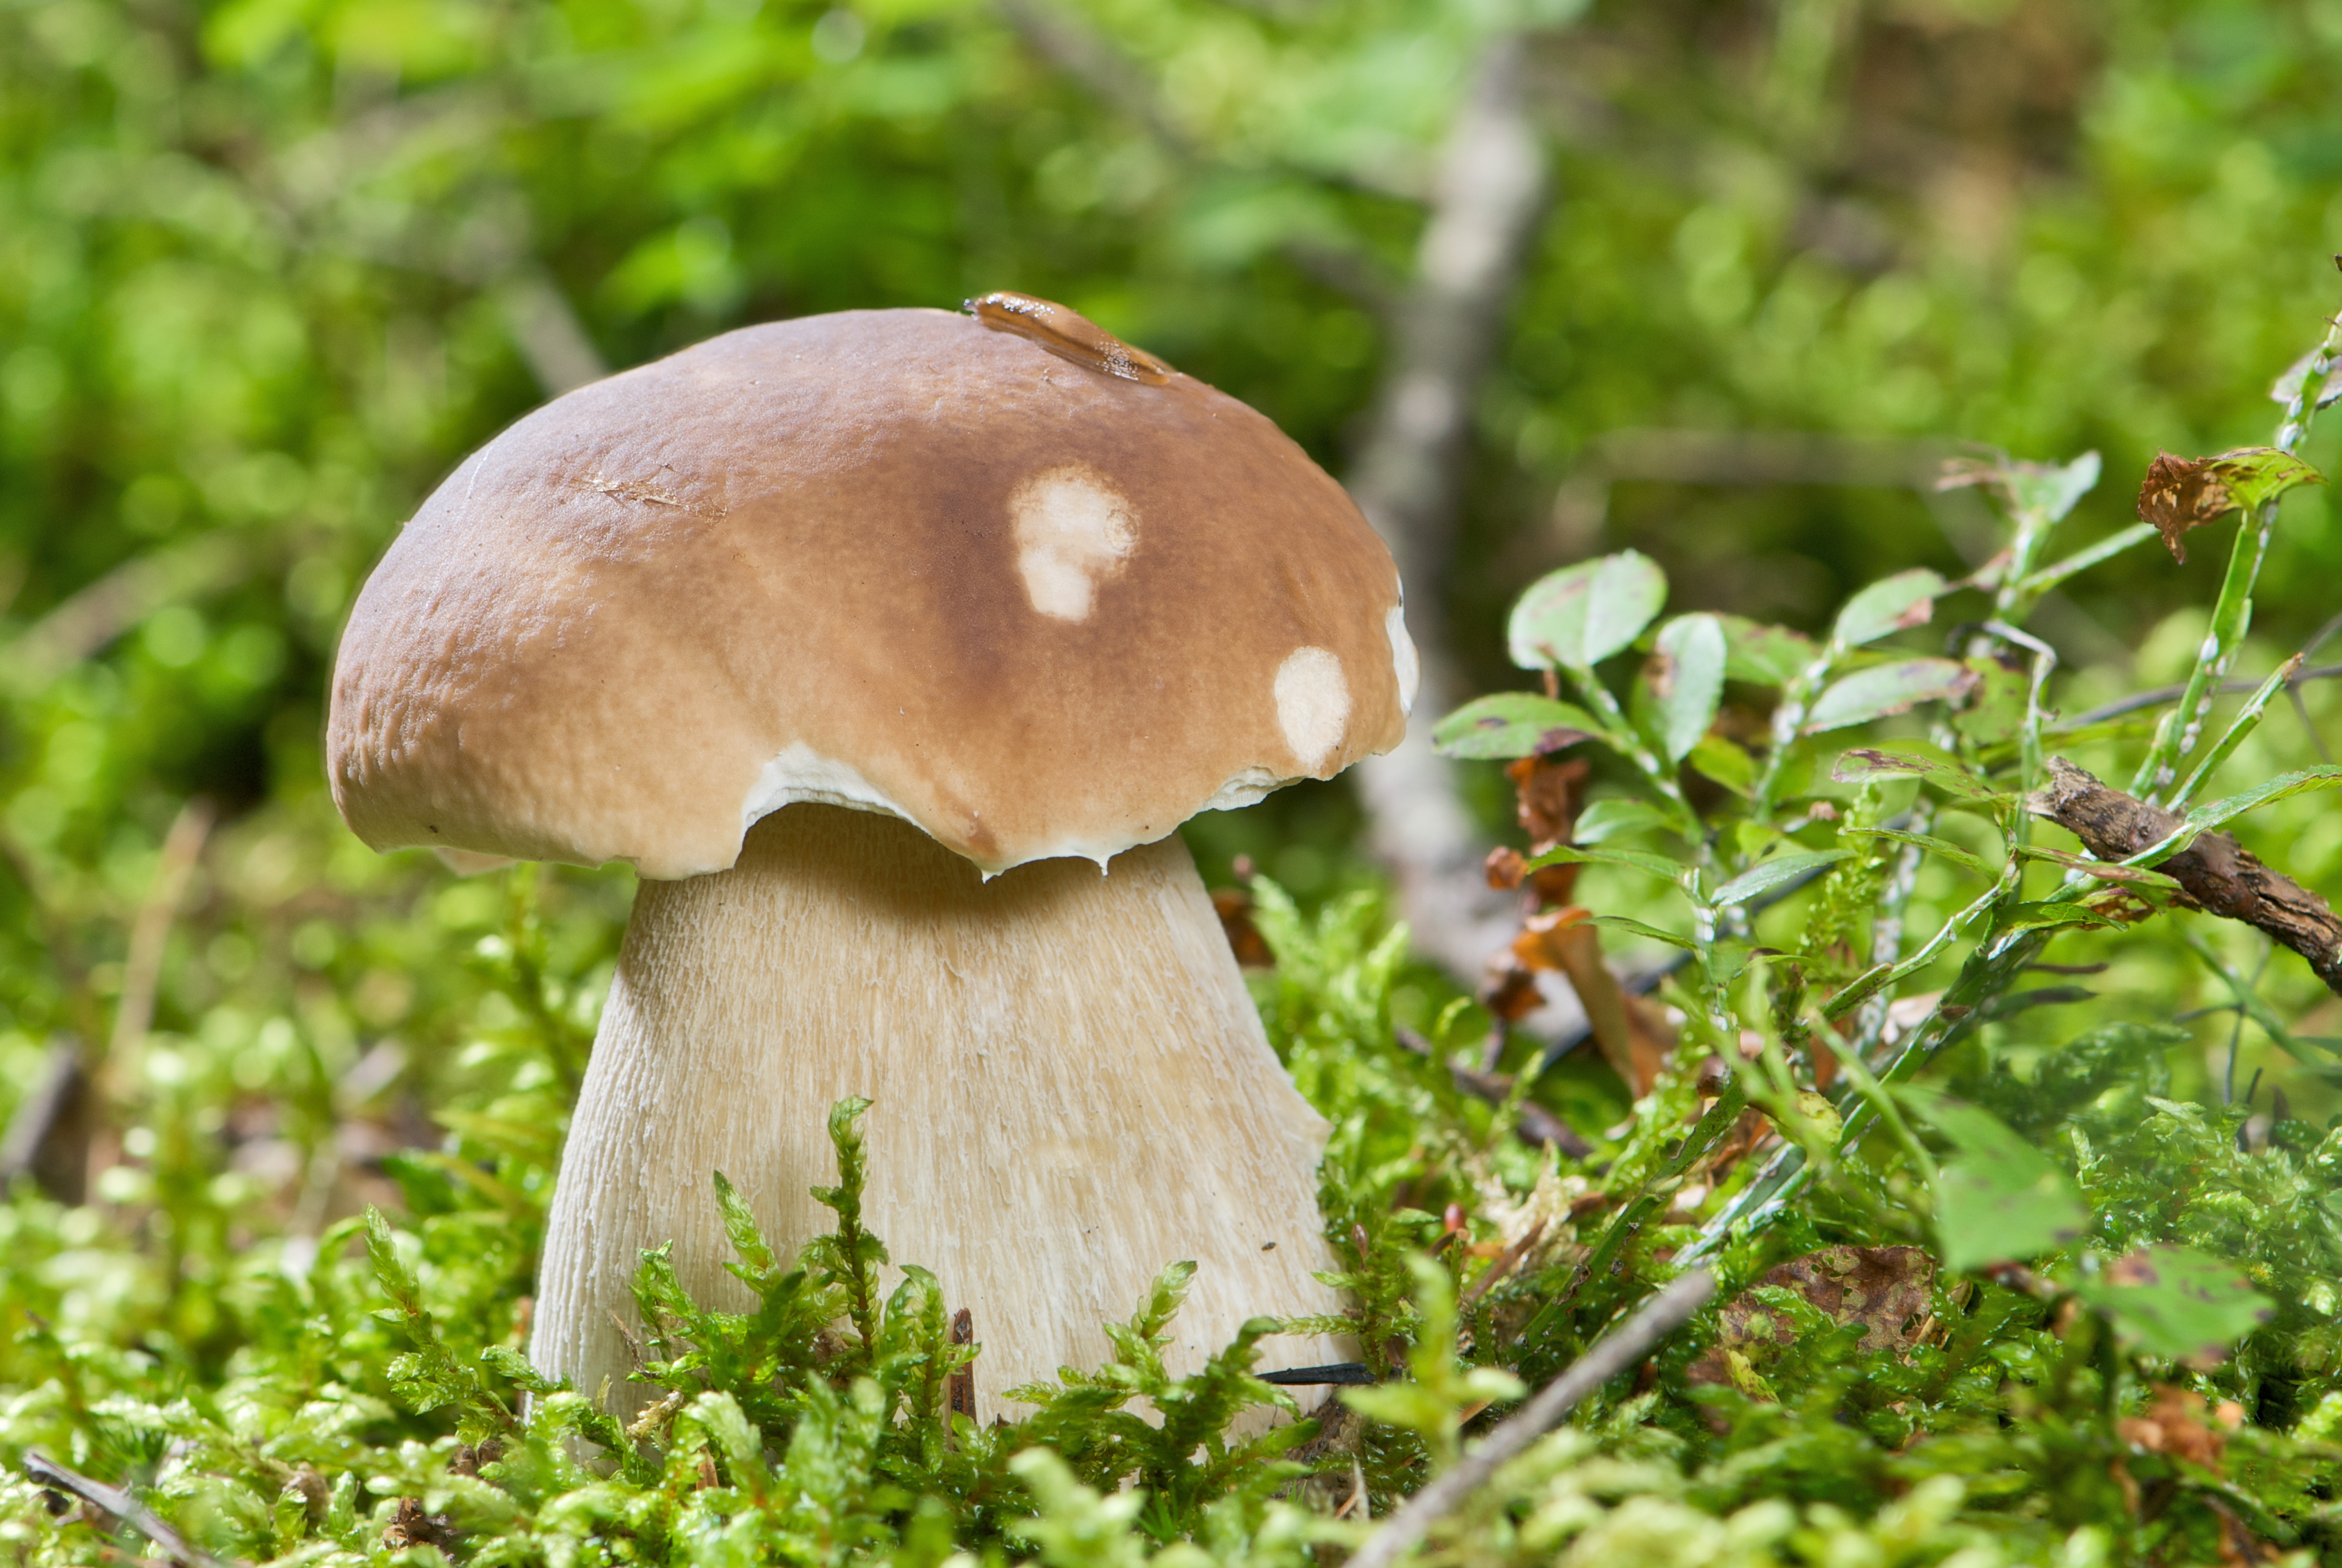


Borowik szlachetny (Boletus edulis) to ceniony grzyb jadalny występujący w lasach iglastych, liściastych i mieszanych na glebach kwaśnych. Tworzy owocniki o mięsistym, brązowym kapeluszu oraz trzonie pokrytym drobną, białawą lub jasnobrązową siateczką. Pory rurek u młodych grzybów są białe, a u dojrzałych zmieniają barwę na żółtą do żółtooliwkowej. Biały miąższ nie zmienia barwy po przekrojeniu. Gatunek ten tworzy mikoryzę z różnymi drzewami, m.in. świerkiem, jodłą, sosną, bukiem i brzozą.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
Kapelusz
- Kształt
- U młodych owocników kapelusz może mieć kształt półkulisty; u dojrzałych owocników — wypukły lub płaski.
- Ukształtowanie powierzchni
- Powierzchnia kapelusza może być gładka lub pomarszczona.
- Pokrycie
- Powierzchnia kapelusza jest naga.
- Połysk powierzchni
- W wilgotnych warunkach powierzchnia kapelusza jest lśniąca.
- Lepkość i śluzowatość
- W wilgotnych warunkach powierzchnia kapelusza może być lepka lub śluzowata.
- Kolor
- Kapelusz może być beżowy, brązowy, ciemnobrązowy, jasnobrązowy, jasnoochrowy lub ochrowobrązowy, u młodych owocników może być jasnobrązowy, a u dojrzałych owocników może być ciemnobrązowy lub czerwonobrązowy.
Brzeg kapelusza może być biały. - Średnica
- Kapelusz może mieć średnicę od 50 do 300 milimetrów.
Spód kapelusza
- Typ
- Hymenofor ma budowę rurkową.
Rurki przy trzonie
- Połączenie z trzonem
- Rurki są przyrośnięte do trzonu.
- Profil przy trzonie
- Rurki są wycięte przy trzonie.
- Oddzielalność
- Rurki są łatwo oddzielalne od kapelusza.
- Kształt porów
- U młodych owocników pory mogą być okrągłe, a u dojrzałych owocników mogą być kanciaste.
- Zmiana koloru
- Po uszkodzeniu lub nacisku pory nie zmieniają barwy.
- Barwa rurek po uszkodzeniu
- Po uszkodzeniu lub nacisku rurki nie zmieniają barwy.
- Naturalna barwa porów
- U młodych owocników pory mogą być białe lub białawe.
U dojrzałych owocników pory mogą być żółte, żółtooliwkowe, oliwkowo-zielonożółte lub żółtozielone. - Naturalna barwa rurek
- U młodych owocników rurki mogą być białe lub białawe.
U dojrzałych owocników rurki mogą być kremowe, bladożółte, żółtooliwkowe, oliwkowo-zielonożółte, żółte lub żółtozielone.
Trzon i podstawa
- Kształt
- Trzon może mieć kształt walcowaty, maczugowaty lub zwężony ku podstawie, u młodych owocników może mieć kształt beczułkowaty, a u dojrzałych owocników może mieć kształt maczugowaty.
- Podstawa
- Podstawa trzonu może być maczugowata lub zgrubiała.
- Kolor
- Trzon może być białawy lub jasnobrązowy.
- Ukształtowanie powierzchni
- U góry powierzchnia trzonu jest siateczkowata.
- Długość
- Trzon może mieć długość od 20 do 300 milimetrów.
- Grubość
- Trzon może mieć grubość od 15 do 120 milimetrów.
- Barwa siateczki
- U góry siateczka trzonu może być biaława, jasnobrązowa lub biała.
Miąższ
- Barwa
- Miąższ może być biały, a w kapeluszu pod skórką może być czerwonobrązowy lub różowawy, a u podstawy trzonu może być brązowawy.
- Twardość i zwartość
- U młodych owocników miąższ może być zwarty, a u dojrzałych owocników może być miękki.
- Smak
- Ma słaby smak.
- Sprężystość
- U młodych owocników miąższ jest sprężysty.
- Struktura
- U dojrzałych owocników miąższ może mieć strukturę watowatą.
U starych owocników miąższ może mieć strukturę gąbczastą. - Zmiana koloru
- Po uszkodzeniu miąższ nie zmienia barwy.
- Zapach
- Zapach miąższu jest słaby, grzybowy.
- Nuta smakowa
- Miąższ ma nutę smakową orzechową.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach iglastych, w lasach liściastych lub w lasach mieszanych.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba.
- Sposób wyrastania
- Owocniki mogą wyrastać pojedynczo lub w grupach.
- Częstość
- Gatunek jest pospolity.
- Owocnikowanie
- Owocniki mogą pojawiać się od czerwca do listopada.
- Obszar występowania
Jadalność i kuchnia
- Jadalność
- Jadalny
- Ocena kulinarna
- Bardzo smaczny
Prawo
Przepisy dla lokalizacji: Polska
- Ochrona
- W Polsce borowik szlachetny nie podlega prawnej ochronie gatunkowej.
- Handel
- Dopuszczony do obrotu
Z czym można pomylić
Goryczak żółciowy
Tylopilus felleus
Najważniejsze różnice
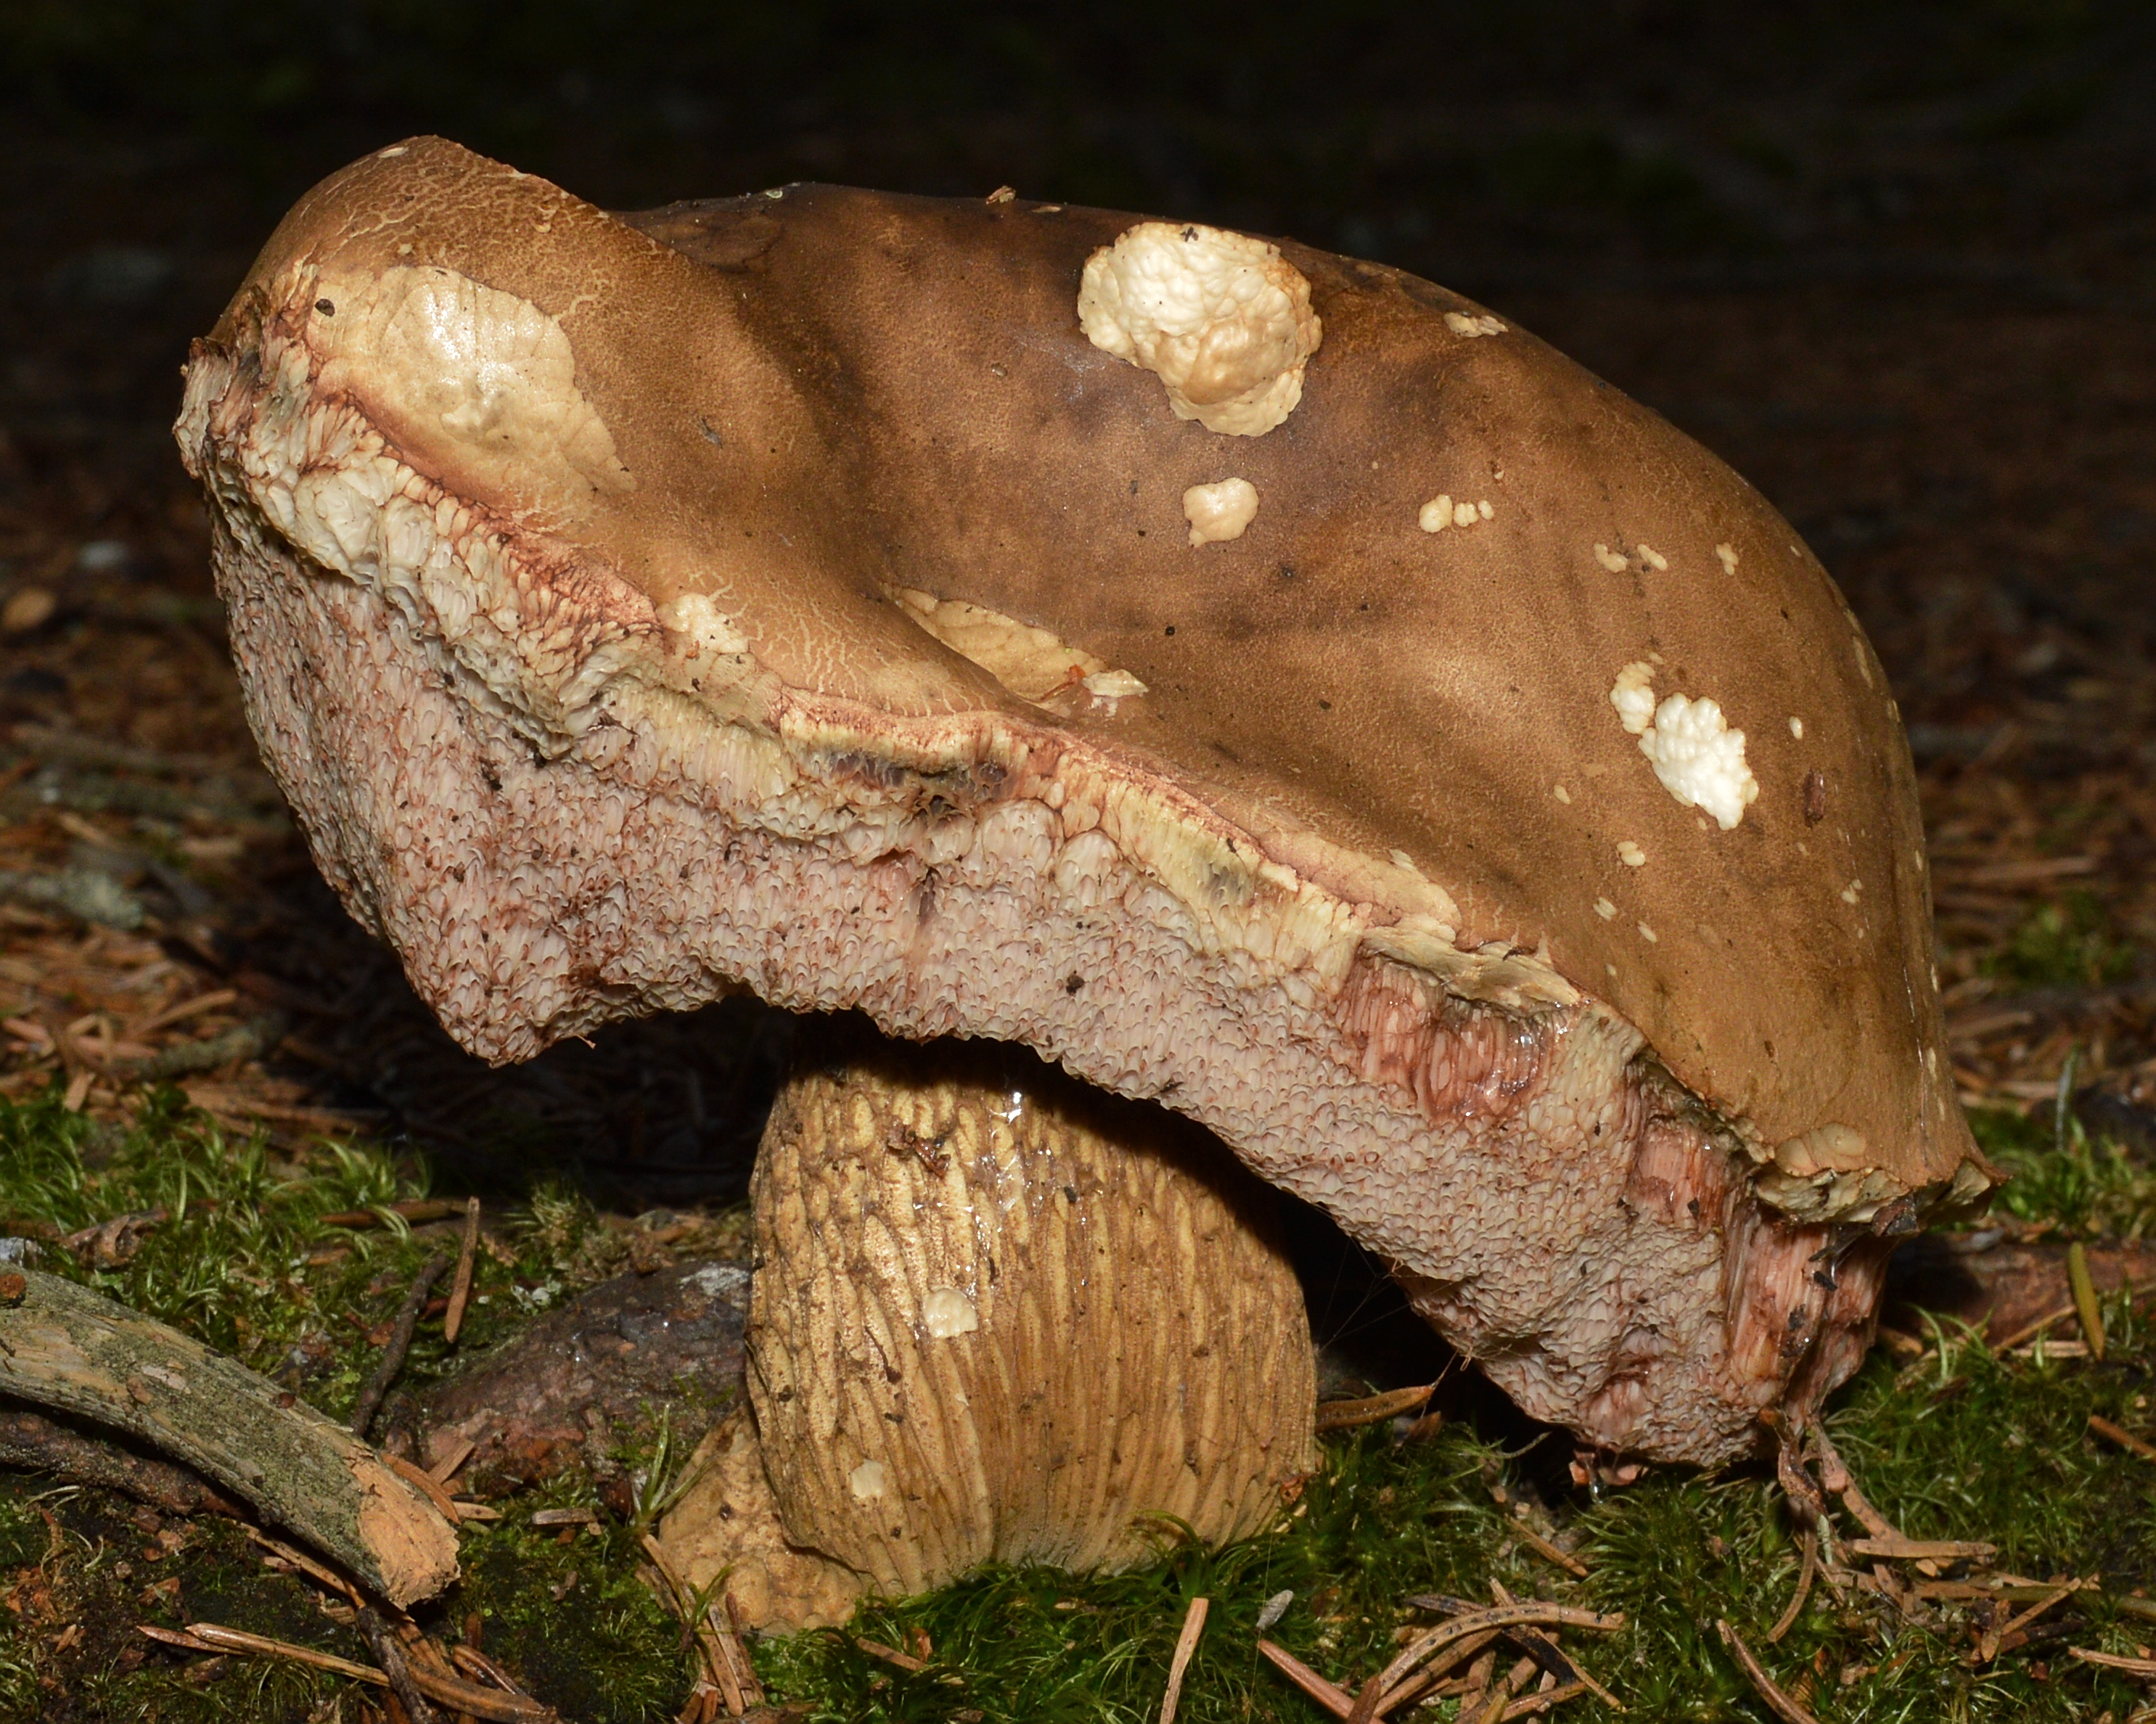
Goryczak żółciowy (Tylopilus felleus) u młodych okazów ma białawe pory, przez co bywa mylony z borowikiem szlachetnym. W miarę dojrzewania jego pory stają się jednak brudnoróżowe, siateczka na trzonie jest gruba, ciemna i wypukła, a kapelusz pozostaje matowy i zamszowaty. Miąższ goryczaka odznacza się intensywną goryczą, której nie usuwa gotowanie ani suszenie, przez co nawet pojedynczy owocnik psuje smak całej potrawy.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Źródło zdjęcia · Public domainBorowik usiatkowany
Boletus reticulatus
Najważniejsze różnice
Borowik usiatkowany (Boletus reticulatus) odznacza się kapeluszem o powierzchni matowej, zamszowej lub długo oszronionej, która podczas suszy często pęka na drobne poletka, oraz wyraźną siateczką pokrywającą często niemal cały trzon. Występuje głównie pod bukami i dębami, pojawiając się zwykle wcześniej w sezonie niż borowik szlachetny. Z uwagi na zmienność cech powierzchni i zasięgu siateczki u obu gatunków, sam zasięg oczek na trzonie nie zawsze pozwala na ich jednoznaczne rozróżnienie.
Boletus pinophilus
Najważniejsze różnice
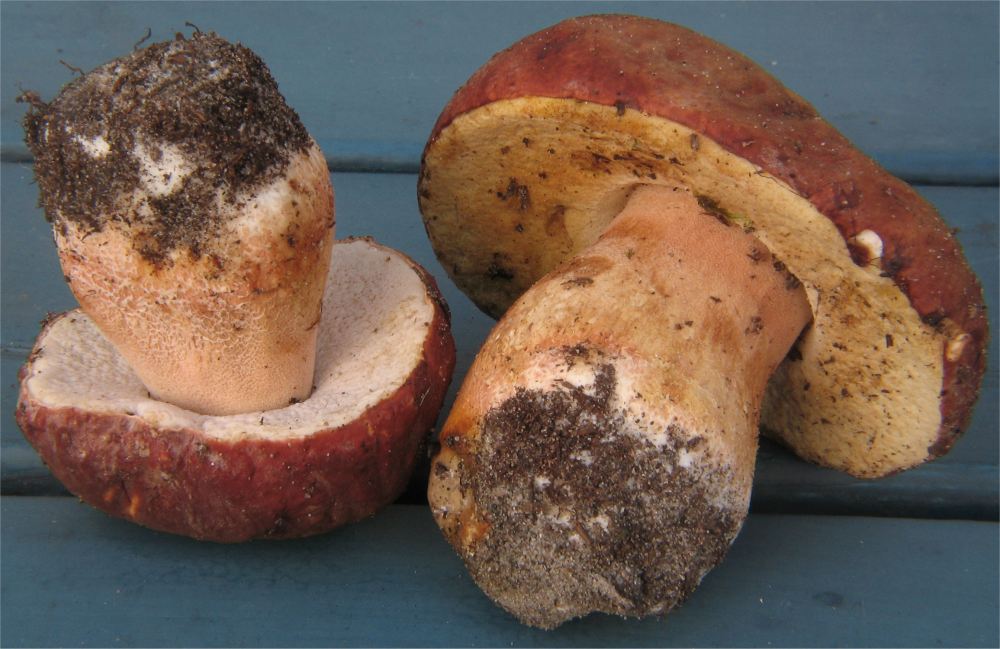
Borowik sosnowy (Boletus pinophilus) charakteryzuje się ciemnym, czerwonobrązowym lub niemal czarnobrązowym kapeluszem i rośnie głównie w powiązaniu z sosnami. W budowie mikroskopowej wyróżnia się grubą, zżelatynizowaną skórką oraz elementami końcowymi o szerokości do 27 µm, zawierającymi czerwonobrązowy, przyścienny pigment inkrustujący, który rozpuszcza się wodorotlenkiem potasu (KOH).
Borowik ciemnobrązowy
Boletus aereus
Najważniejsze różnice
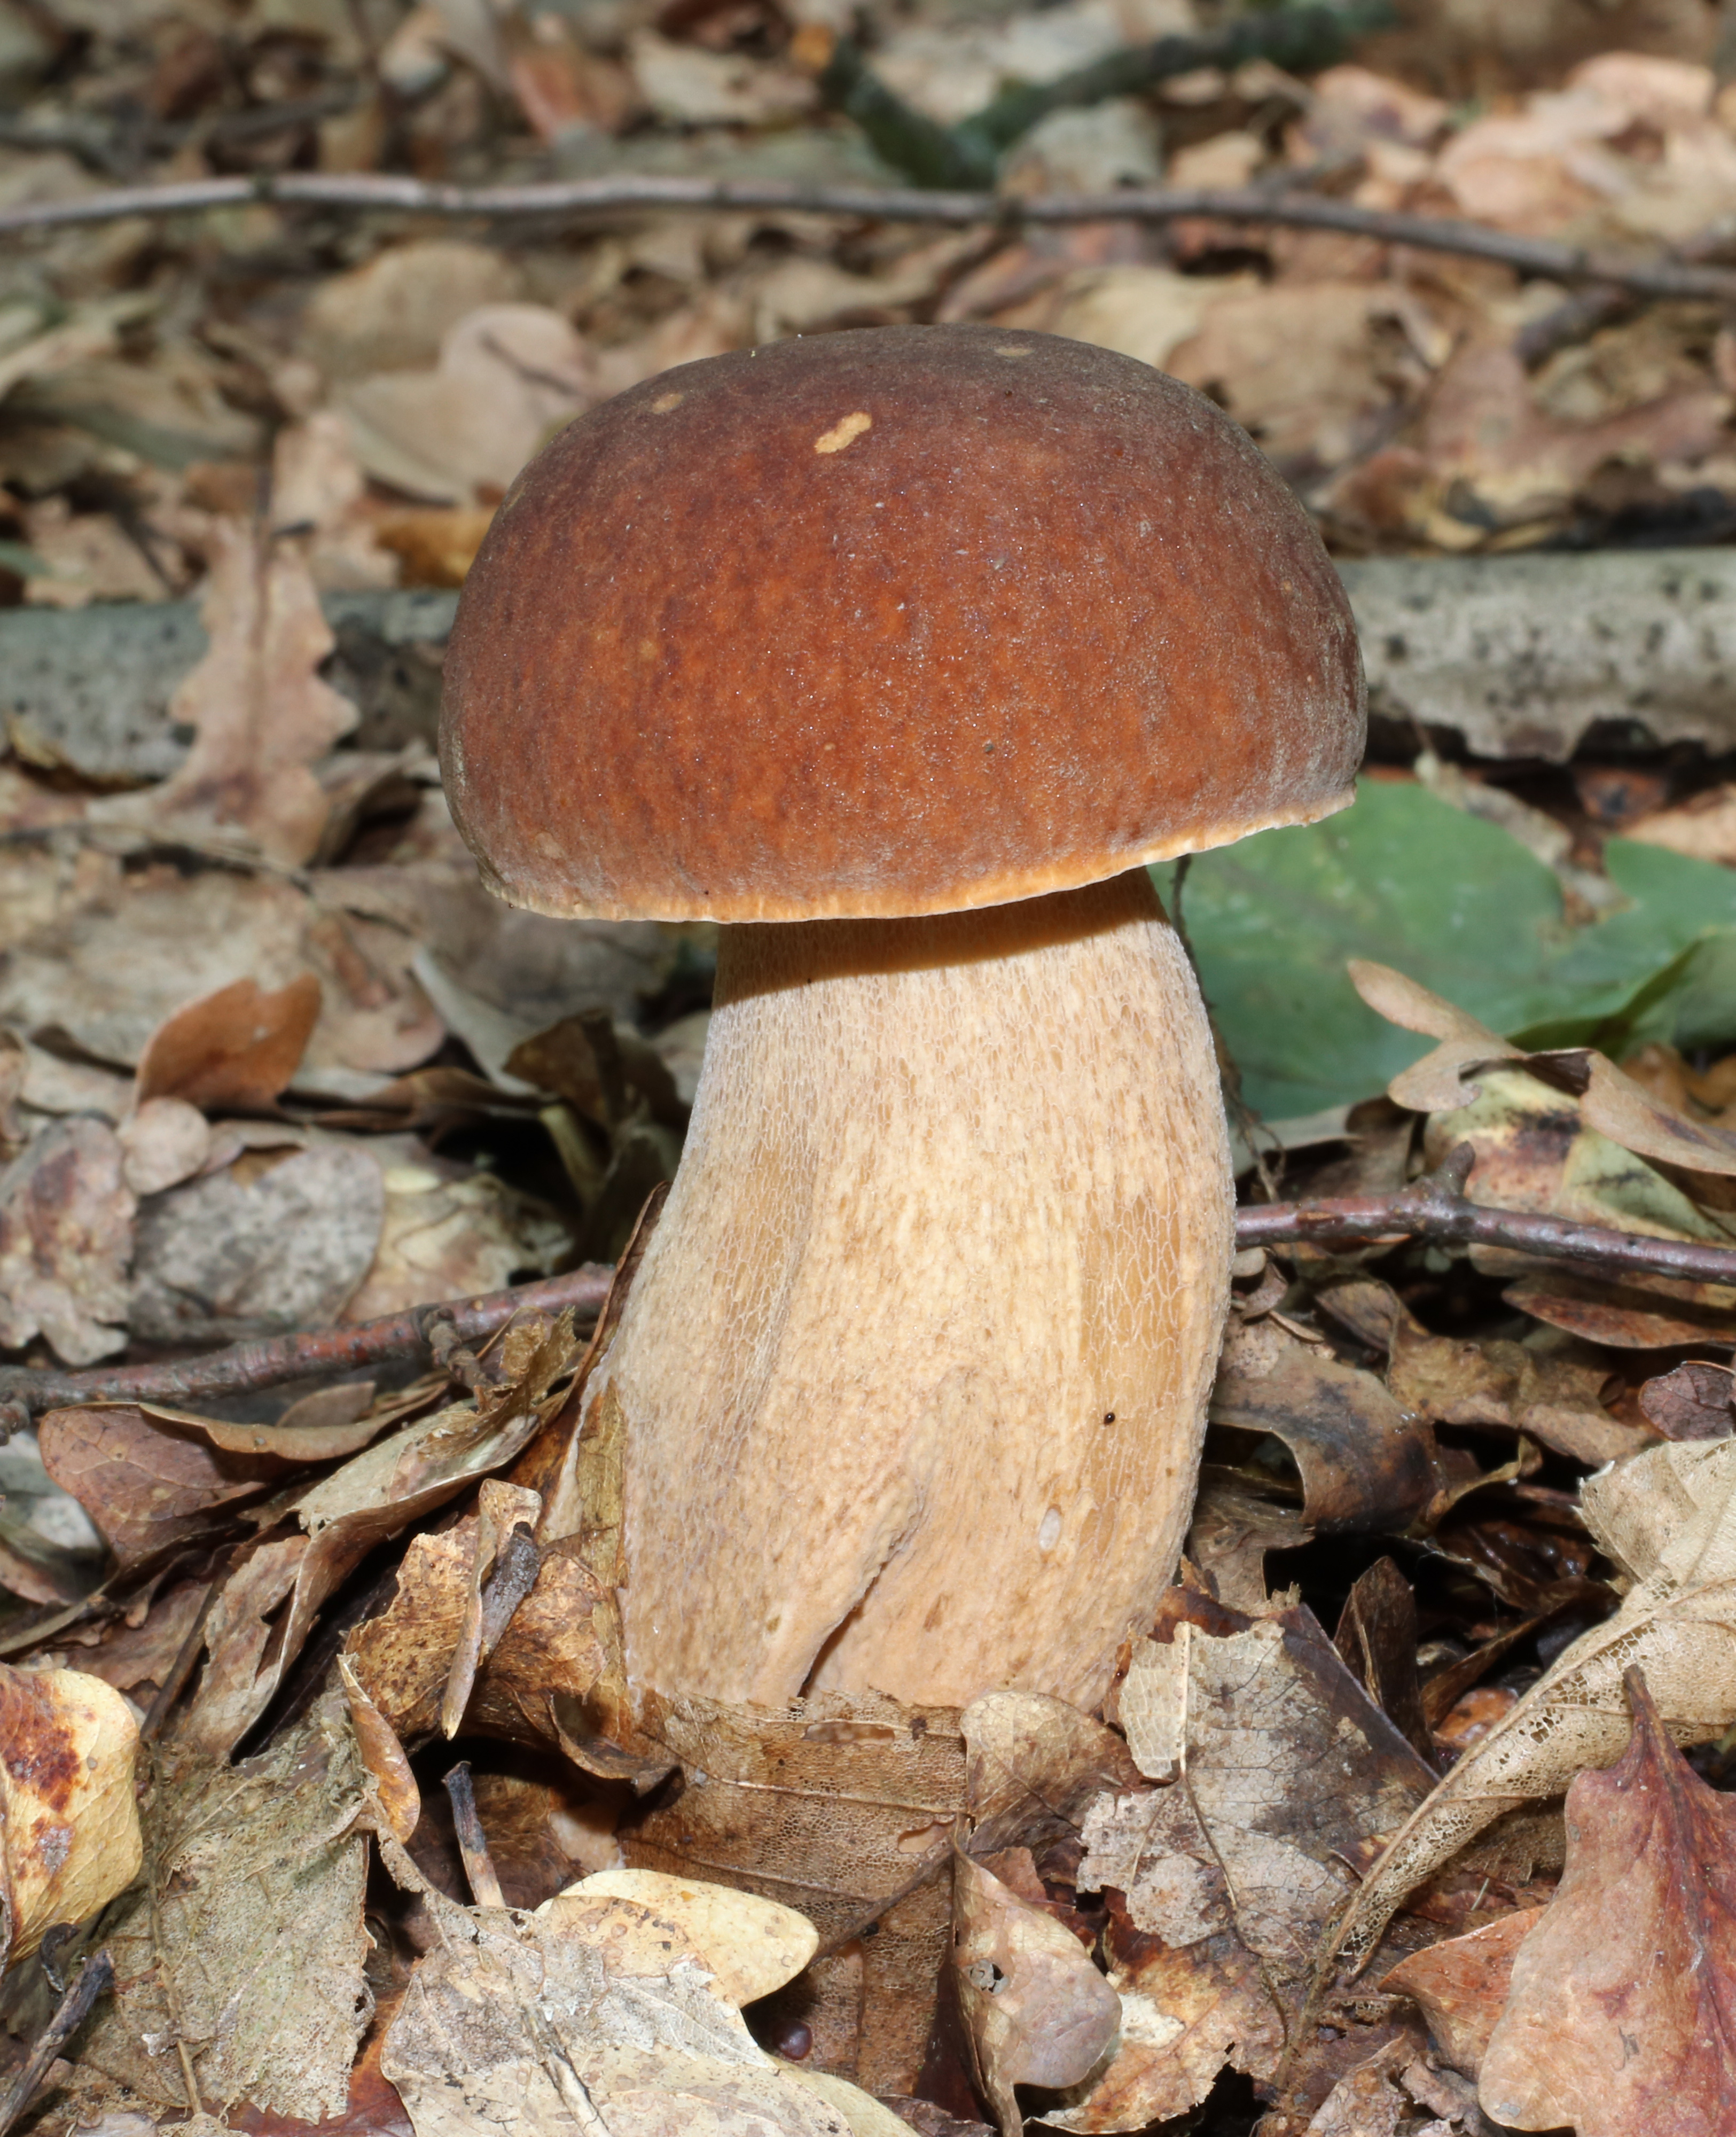
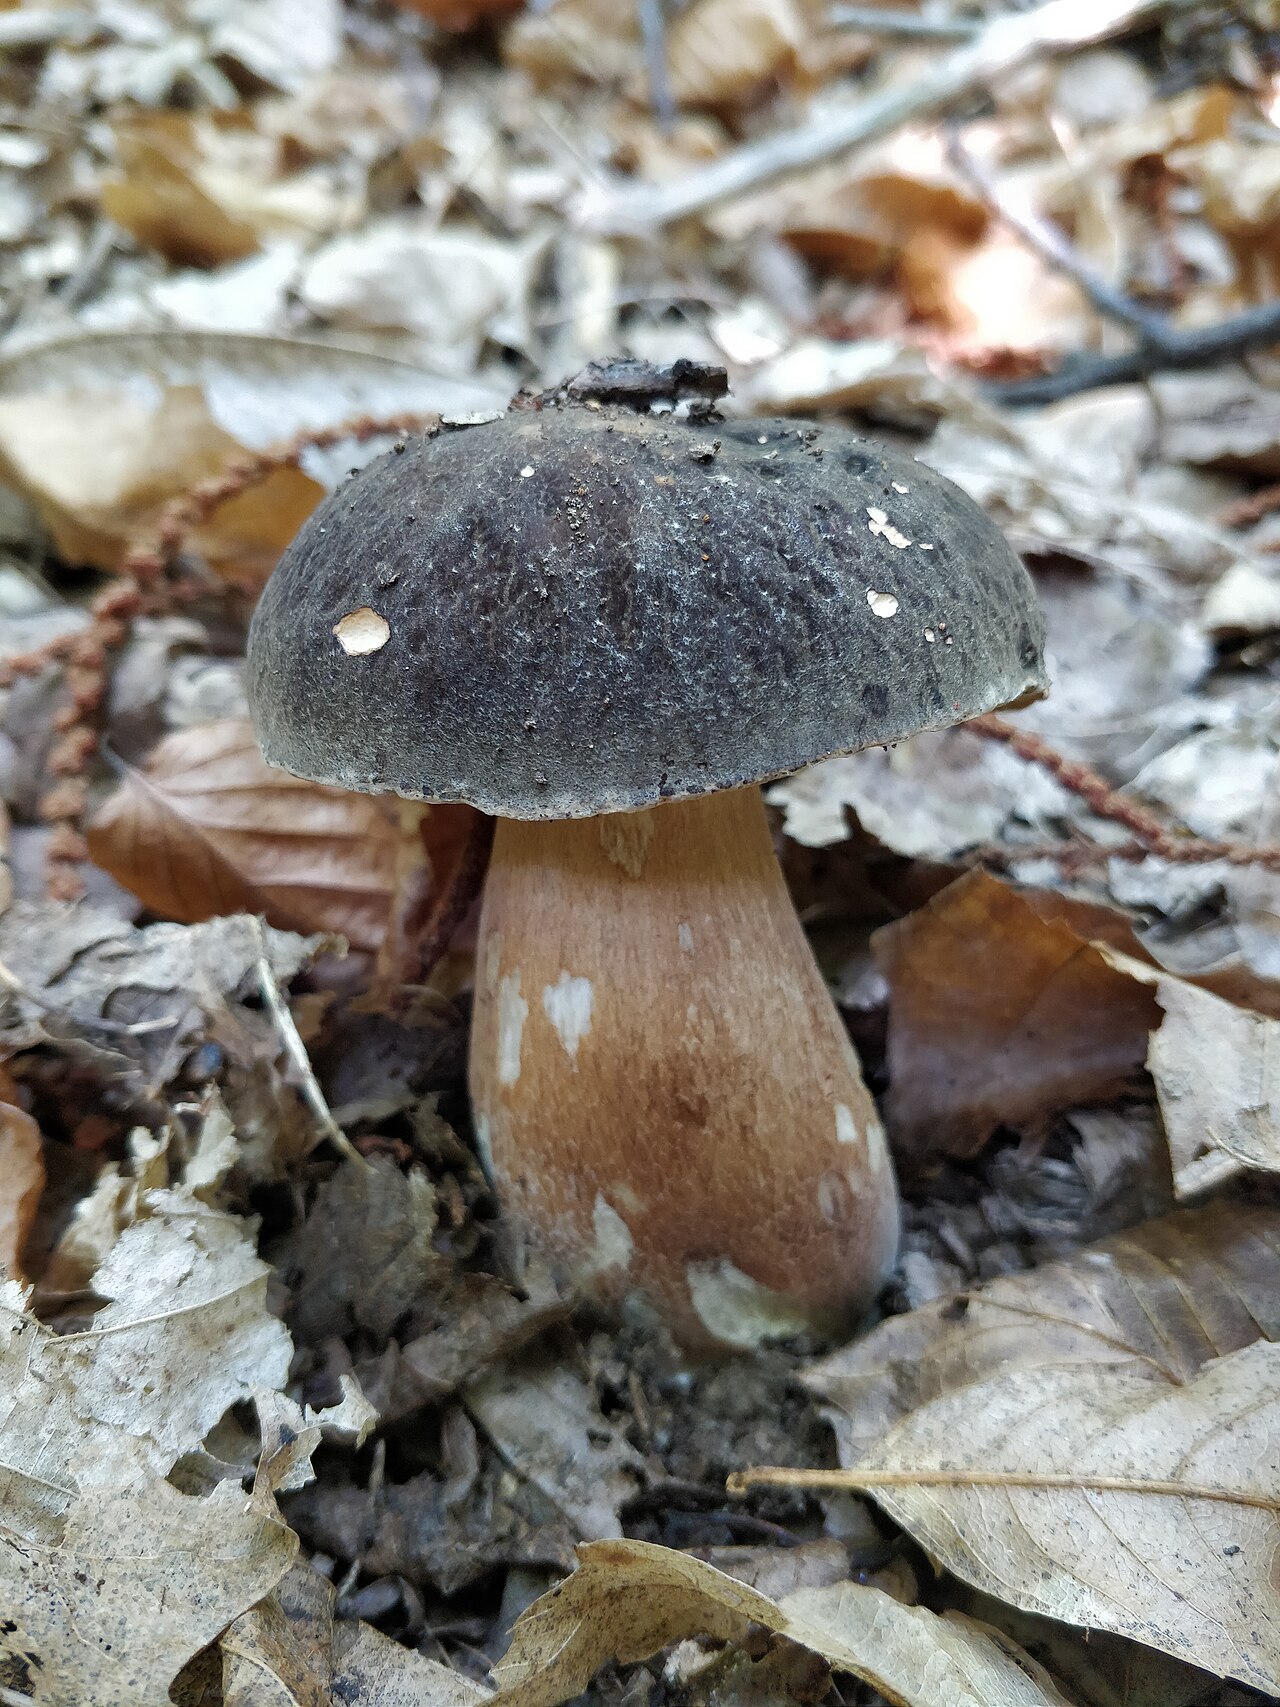
Borowik ciemnobrązowy (Boletus aereus) występuje w ciepłych lasach liściastych, głównie dębowych, także na glebach wapiennych, rzadziej pod kasztanowcami. Ma bardzo ciemny, suchy, delikatnie omszony kapelusz. Pod mikroskopem elementy końcowe jego skórki osiągają do 11 µm szerokości i zawierają drobnoziarnisty pigment wewnątrzkomórkowy.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Źródło zdjęcia · CC BY 3.0Gorzkoborowik żółtopory
Caloboletus calopus
Najważniejsze różnice
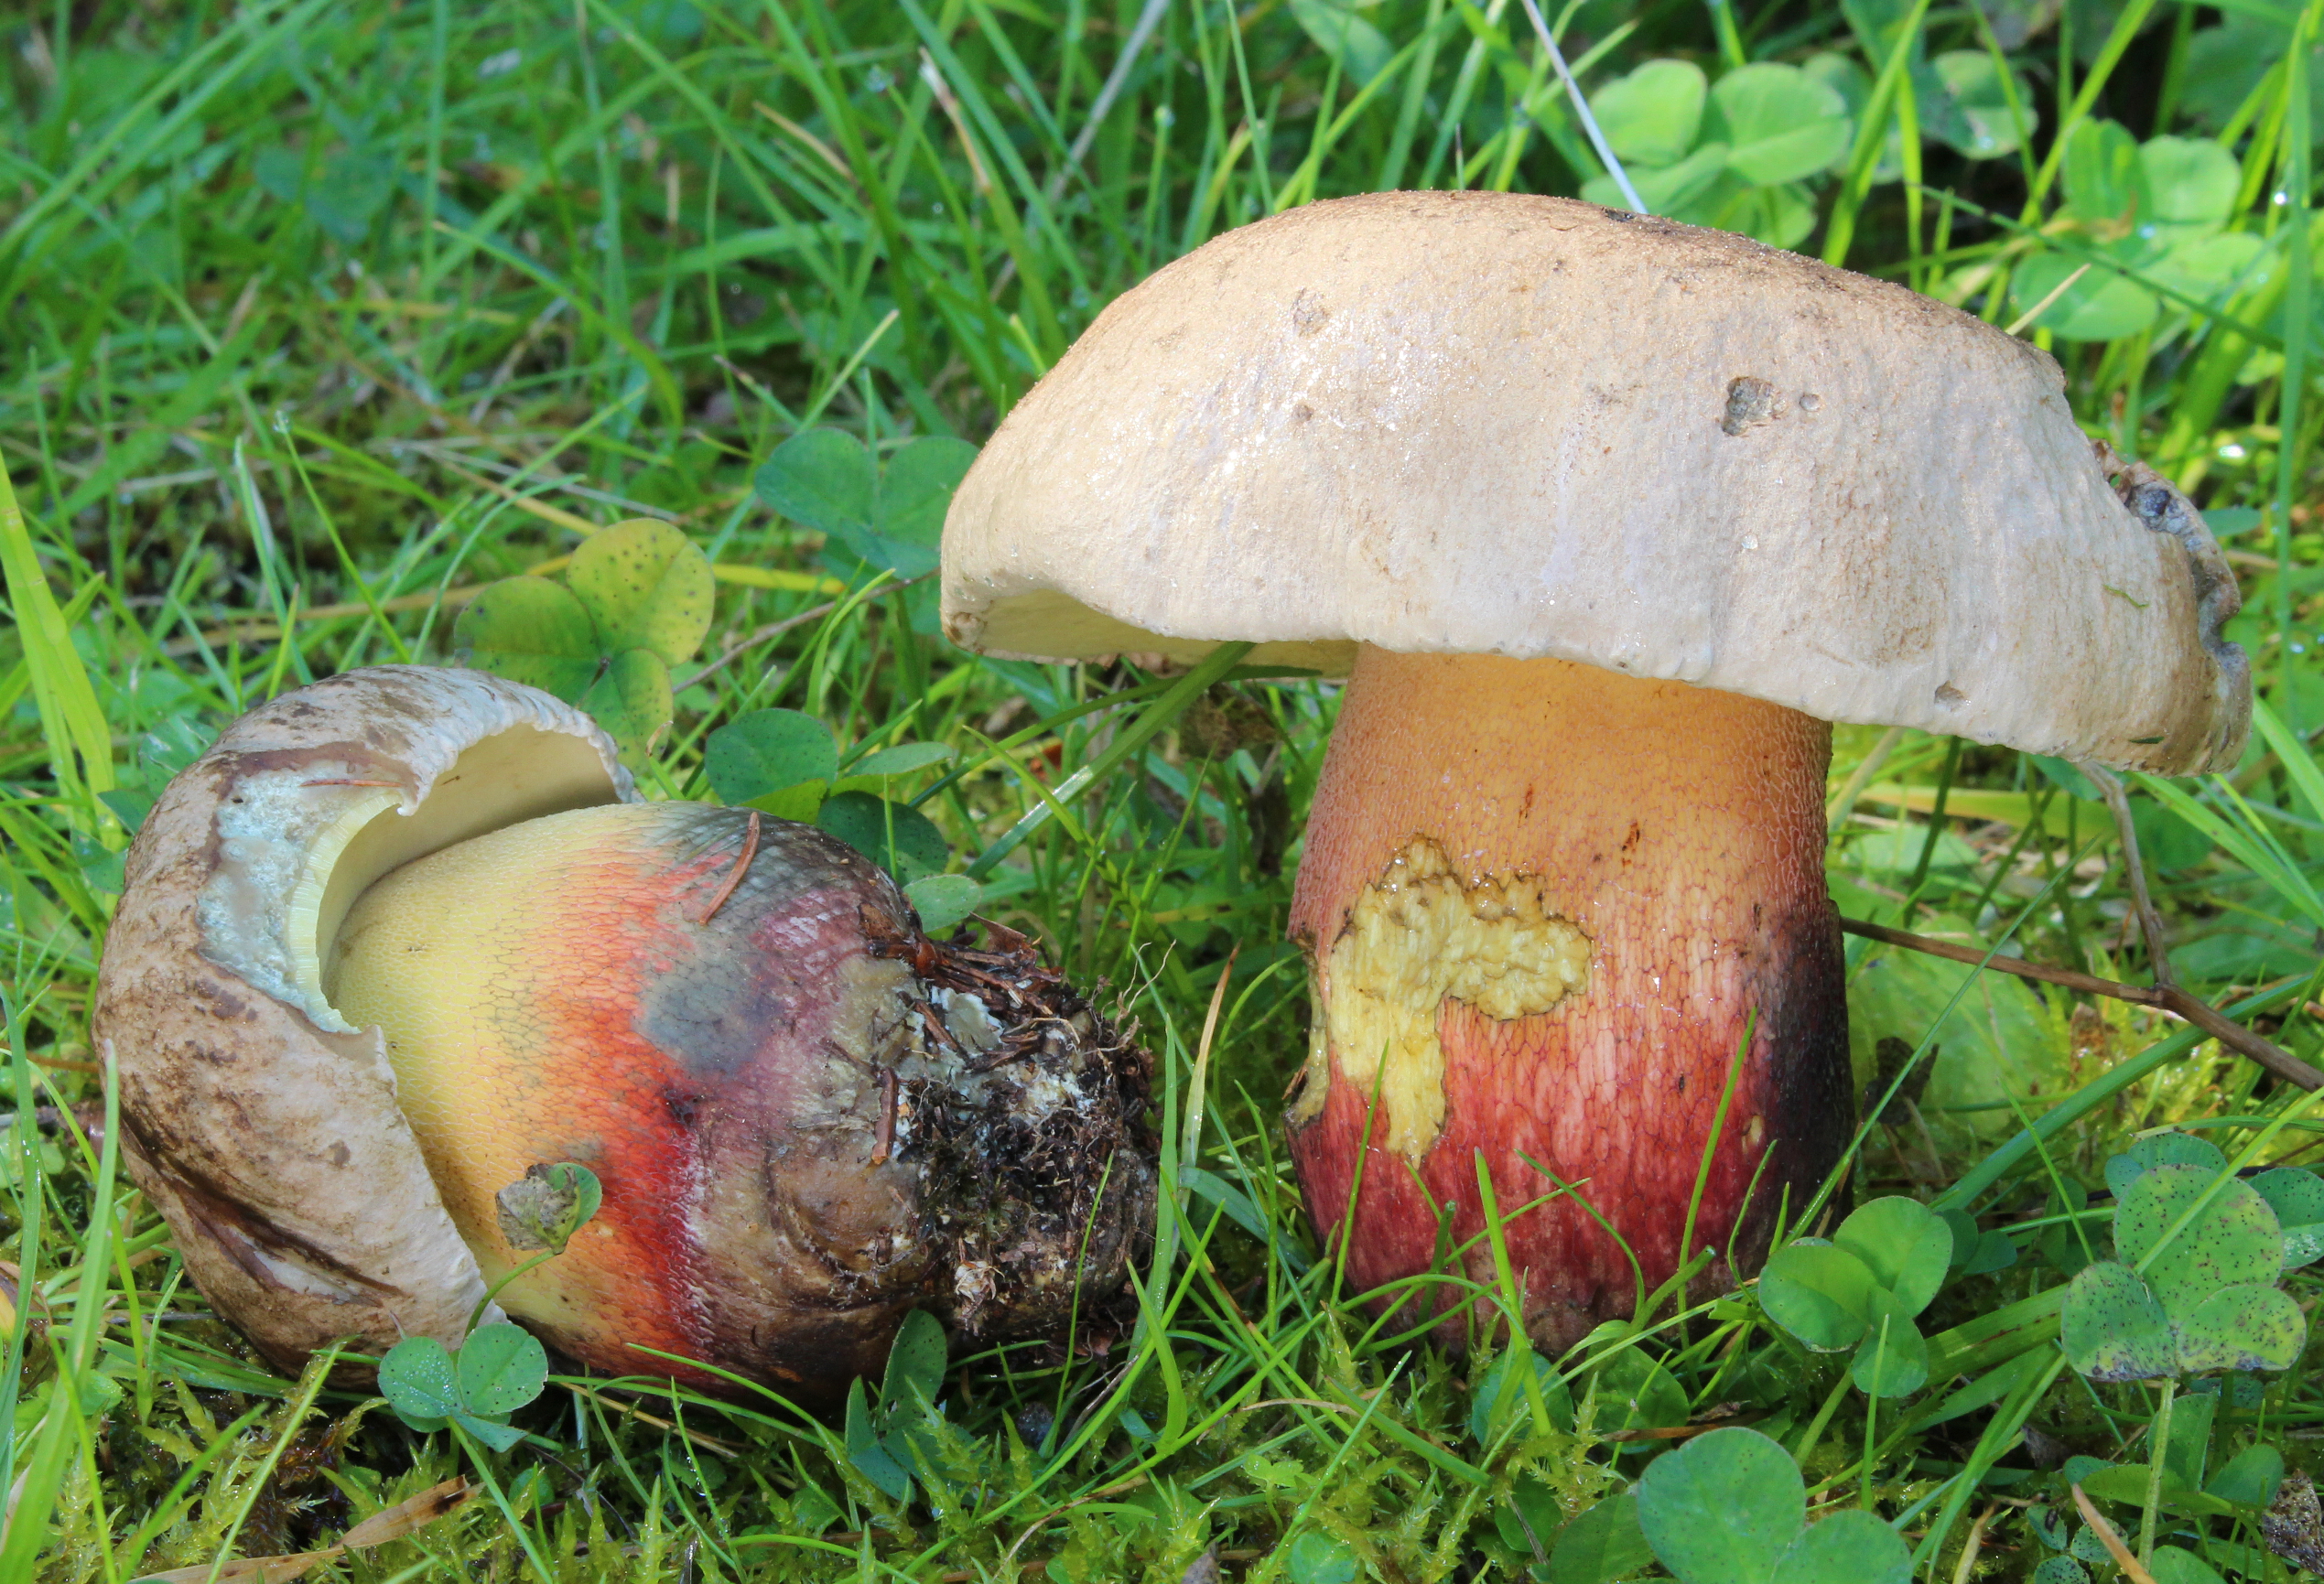
Pomyłka z borowikiem szlachetnym (Boletus edulis) jest w terenie możliwa głównie przy pobieżnym spojrzeniu z góry na młode owocniki. Borowik szlachetny odróżnia się brązowym kapeluszem, rurkami białymi do żółtozielonych, które nie sinieją po ucisku, oraz jasnym trzonem bez śladu jaskrawej czerwieni i łagodnym, przyjemnym smakiem.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Źródło zdjęcia · CC BY-SA 4.0Podgrzyb brunatny
Imleria badia
Najważniejsze różnice
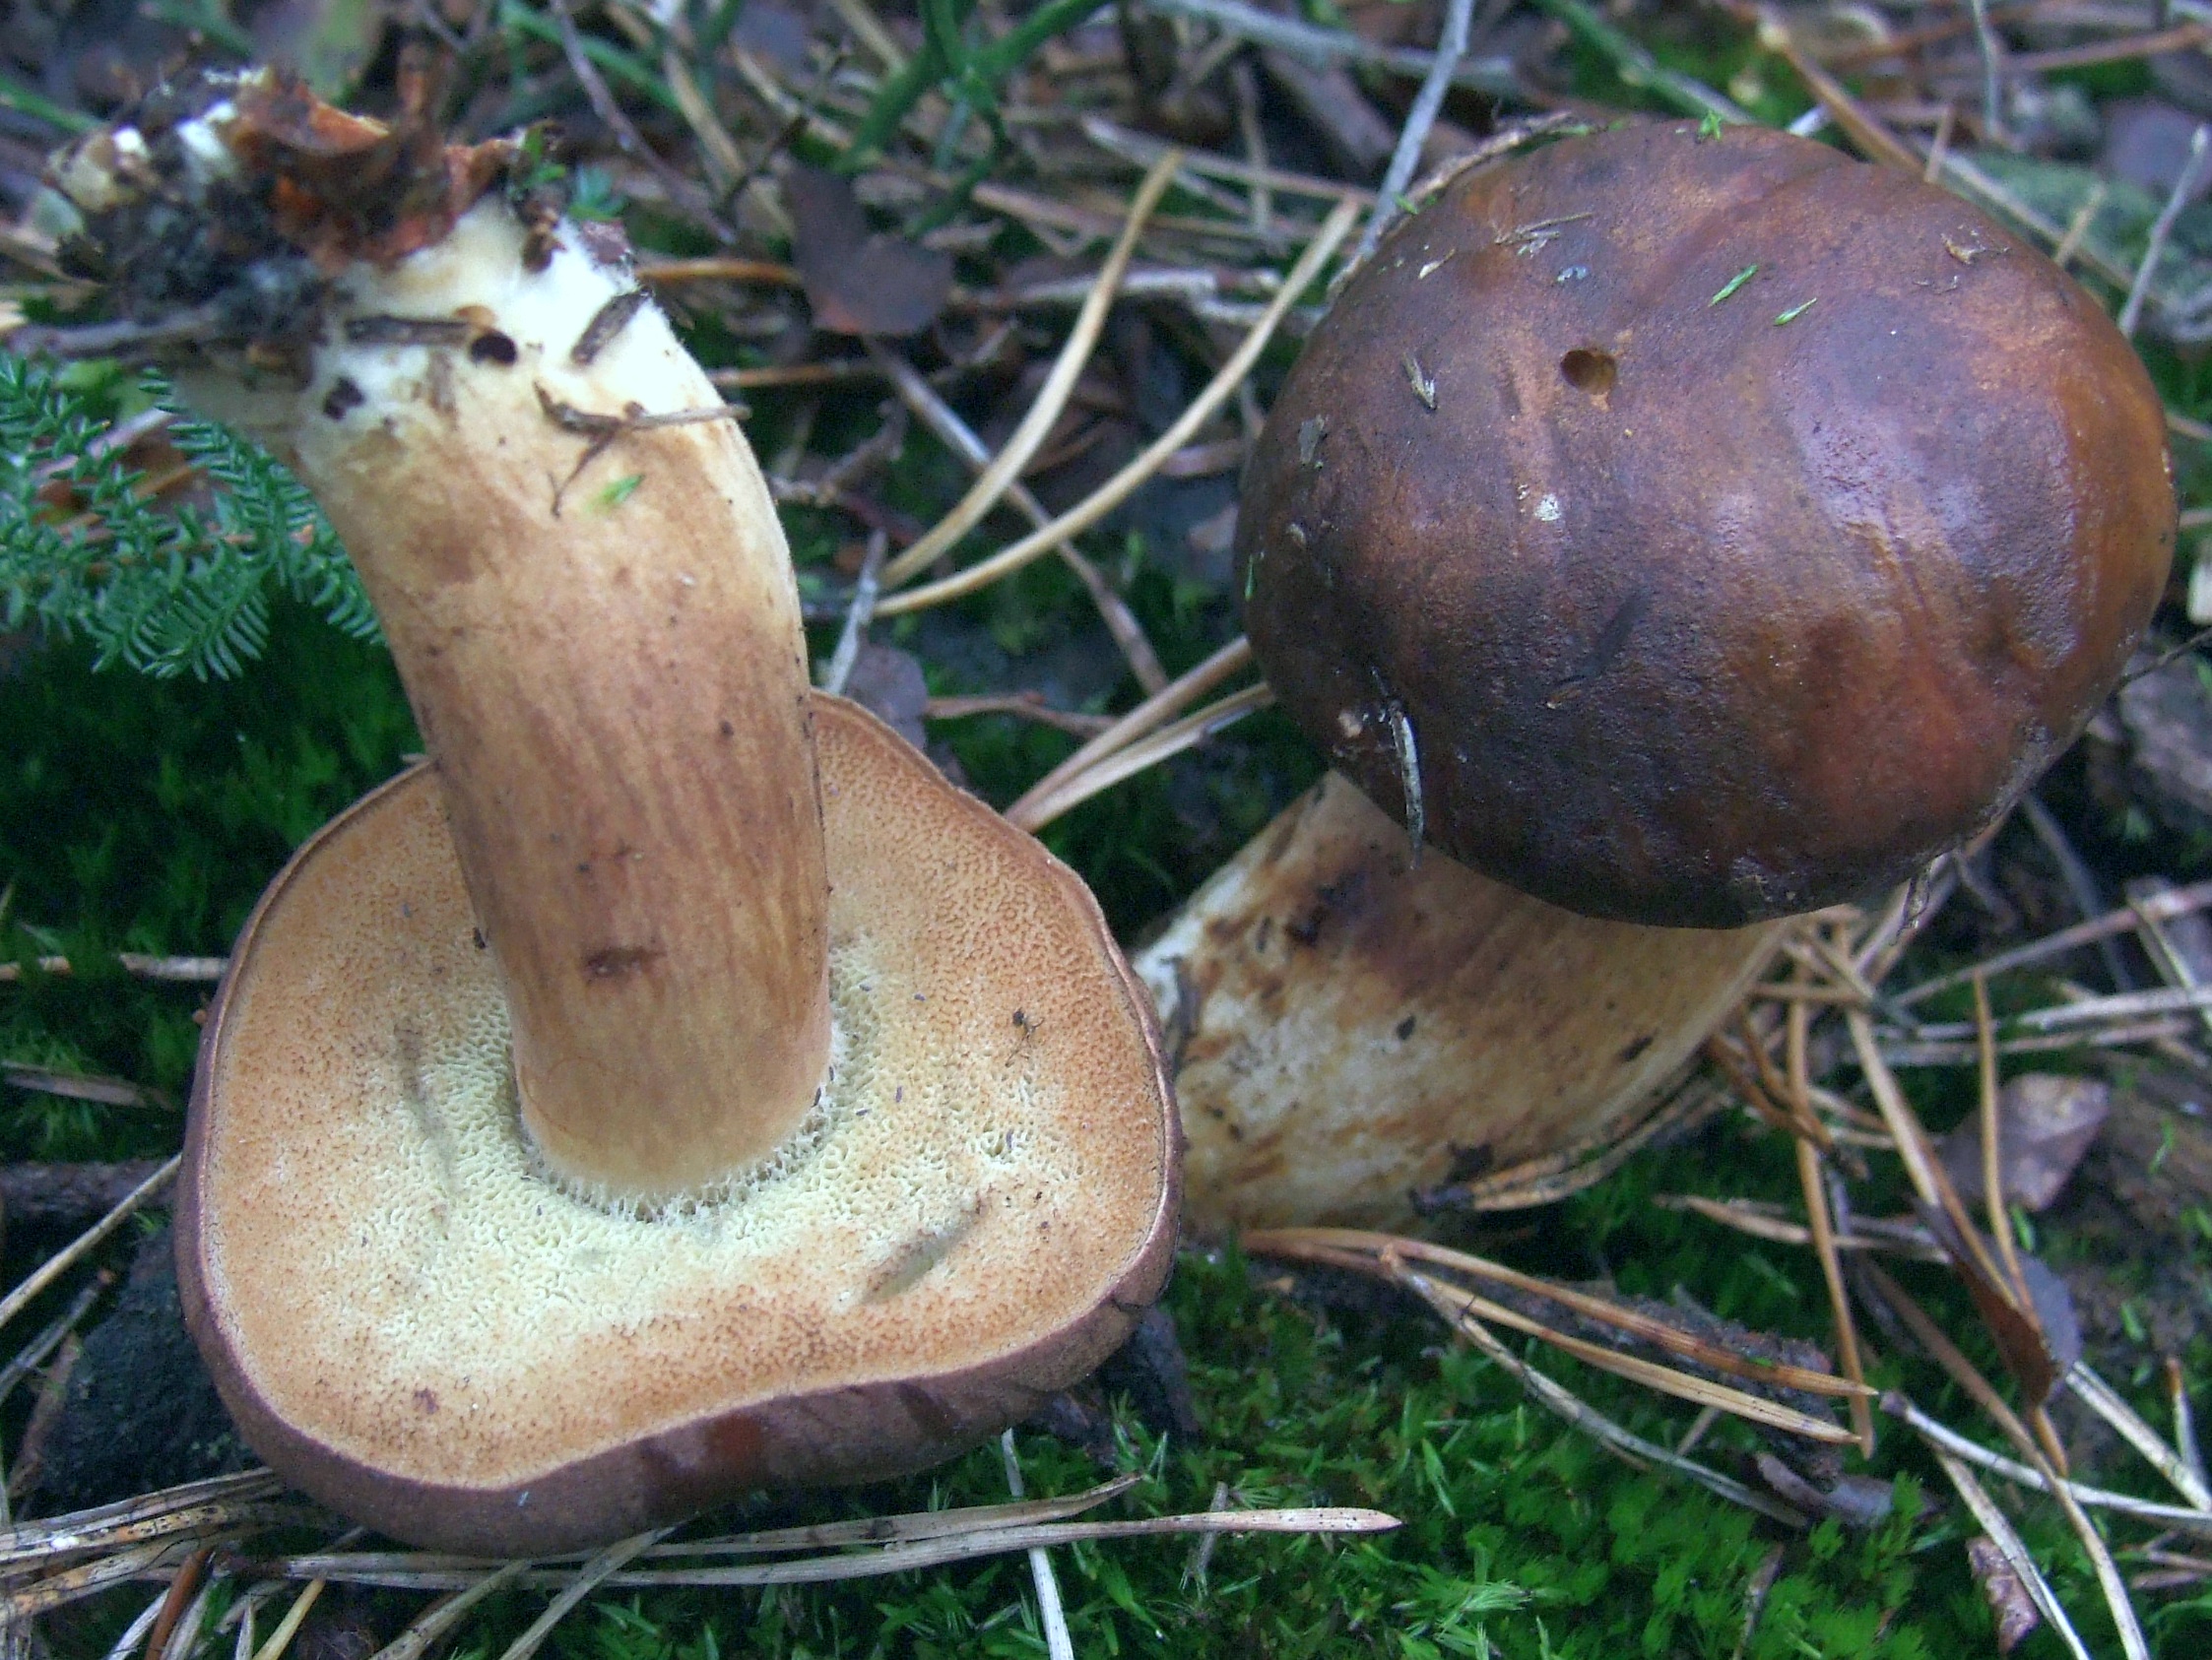
Podgrzybek brunatny (Imleria badia) i borowik szlachetny (Boletus edulis) to popularne grzyby jadalne. Borowik szlachetny ma trzon z jasną siateczką oraz pory początkowo białe, a z wiekiem żółte do żółtooliwkowych, które pod naciskiem nie zmieniają barwy. Jego miąższ po przekrojeniu pozostaje biały. Podgrzybek brunatny ma trzon brązowawy, pozbawiony siateczki, a pory pod uciskiem wyraźnie sinieją na niebiesko. Miąższ podgrzybka po przekrojeniu błękitnieje, zwłaszcza w kapeluszu i nad rurkami.
FAQ
Czy borowik szlachetny sinieje po przekrojeniu?
Nie. Miąższ borowika szlachetnego nie zmienia barwy po przekrojeniu – nie sinieje ani nie ciemnieje w kontakcie z powietrzem. Brak zmiany zabarwienia na cięciu to ważna cecha diagnostyczna.
Czy kapelusz borowika może być śliski?
Tak. W czasie wilgotnej pogody kapelusz bywa śliski, lepki lub śluzowaty i błyszczący, a u młodych owocników lekko lepki. Sama powierzchnia kapelusza bywa gładka lub pomarszczona.
Czy każdy borowik szlachetny ma ciemnobrązowy kapelusz?
Nie. Barwa kapelusza bywa zmienna: od jasnobrązowej przez orzechową po ciemnobrązową i czerwonobrązową. W szerokim ujęciu gatunku uwzględnia się także formy o jeszcze jaśniejszym zabarwieniu.
Czy prawdziwek i borowik szlachetny to to samo?
Prawdziwek to potoczna nazwa borowika szlachetnego, jednak w powszechnym użyciu bywa odnoszona także do kilku podobnych gatunków borowików zbieranych przez grzybiarzy.
Dlaczego borowik ma raz białe, a raz żółtooliwkowe pory?
Zależy to od dojrzałości owocnika. U młodych grzybów pory są białe, natomiast u dojrzałych stają się żółte do żółtooliwkowych. Z wiekiem drobne, okrągławe pory stają się ponadto kanciaste.
Czy suszenie wzmacnia zapach borowika?
Tak. Świeże owocniki mają słaby zapach grzybowy, natomiast suszenie wyraźnie wzmacnia aromat. Wysuszony borowik pachnie znacznie mocniej i stanowi tradycyjny składnik polskich zup oraz pierogów.
Jak duży może być kapelusz borowika szlachetnego?
W źródłach polskich Snowarski podaje średnicę 60–250 mm, a czeski Tejkal 50–250 mm. Z kolei opracowania Muñoza i Korhonena notują dla borowika szlachetnego kapelusze osiągające do 300 mm (30 cm).
Jak odróżnić borowika szlachetnego od goryczaka żółciowego?
Goryczak żółciowy ma ciemną, grubą siateczkę na trzonie i dojrzałe pory w odcieniu różowym. U borowika siateczka jest drobna, biaława lub jasnobrązowa, a dojrzałe pory są żółte do żółtooliwkowych.
Kiedy można znaleźć borowika szlachetnego?
Zależy to od ujęcia regionalnego. W źródłach polskich okres występowania określa się jako lato i jesień, natomiast w Czechach grzyb owocnikuje w powtarzalnym przedziale od czerwca do października.
Pod jakimi drzewami rośnie borowik szlachetny?
Borowik szlachetny rośnie w lasach iglastych, liściastych i mieszanych. Tworzy powiązania mikoryzowe z różnymi drzewami: źródła wymieniają tu świerka, jodłę, sosnę, buka oraz brzozę.
Miłośnik
Spód kapelusza
- Długość rurek
- Rurki mogą mieć długość od 5 do 30 milimetrów.
Nazwy i historia
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
- Pozostałe nazwy
- borowik szlachetny, prawak, prawdziwek, prawok, prawus, prawusek, prawy
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników może mieć barwę brązową lub zieloną.
- Odcień wysypu
- Może występować ciemnooliwkowobrązowy lub brązowooliwkowy odcień.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik może mieć kształt elipsoidalny, wydłużony elipsoidalny lub wrzecionowaty.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 12 do 19,5 mikrometra i szerokość od 4 do 7 mikrometrów.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Ekologia i rozmieszczenie
- Odczyn gleby
- Preferuje gleby kwaśne.
- Wapienność gleby
- Występuje na glebie bezwapiennej.
- Partnerzy mikoryzowi
- Mikoryzę z tym grzybem tworzą świerki, jodły, sosny, buki i brzoza.
Mikoryzę z tym grzybem tworzy świerk pospolity.
Zastosowania pozakulinarne
W zakresie pozakulinarnych zastosowań borowika szlachetnego źródła naukowe (m.in. publikacja w IMA Fungus, doi:10.1186/s43008-024-00156-7) odnotowują nieliczne, lokalne relacje etnomykologiczne. W badaniach terenowych nad tradycyjną wiedzą o grzybach udokumentowano przekaz dotyczący ludowej praktyki miejscowego stosowania owocników tego gatunku przy chorobach skóry.
Zapis ten stanowi wyłącznie opis zastanej relacji etnomykologicznej i element lokalnego folkloru zielarskiego, bez naukowego potwierdzenia skuteczności biologicznej czy działania leczniczego. Współczesna literatura mykologiczna i etnobiologiczna traktuje tę wzmiankę jedynie jako świadectwo dawnych zwyczajów, bez formułowania jakichkolwiek zaleceń terapeutycznych, medycznych czy receptur aplikacyjnych. Wszelkie pozakulinarne wykorzystanie borowika szlachetnego miało charakter marginalny i historyczny w zestawieniu z jego powszechnym przeznaczeniem spożywczym.
Historia i kultura
Borowik szlachetny zajmuje fundamentalne miejsce w europejskiej kulturze i tradycji leśnej, będąc powszechnie uznawanym za najbardziej prestiżowy grzyb w tradycjach zbierackich. W historii mykologii naukowej kluczowym momentem było formalne opisanie i nadanie nazwy gatunkowej Boletus edulis przez francuskiego przyrodnika Jeana Baptiste'a Bulliarda w 1782 roku.
W polskiej tradycji literackiej motyw borowika został utrwalony w III księdze epopei „Pan Tadeusz” Adama Mickiewicza („Umizgi”), gdzie w opisie grzybobrania pojawia się wzmianka o borowiku nazywanym w pieśni „grzybów pułkownikiem”. Odniesienia tego nie należy jednak bezpośrednio utożsamiać ze współczesnym, ścisłym ujęciem taksonomicznym gatunku, lecz z dawnym, kulturowym postrzeganiem szlachetnych grzybów leśnych.
Znaczenie tego grzyba w kulturze ludowej Europy Środkowo-Wschodniej potwierdzają współczesne badania etnobiologiczne, m.in. analizy tradycji prowadzone na pograniczu ukraińsko-rumuńskim. Wskazują one na wyjątkową trwałość wiedzy o borowiku w pamięci zbiorowej lokalnych społeczności. Grzyb ten posiada również silną symbolikę świąteczną i obrzędową, stanowiąc tradycyjny element wieczerzy wigilijnej jako symbol więzi z naturą.
Jadalność i bezpieczeństwo
Borowik szlachetny jest powszechnie cenionym grzybem jadalnym o łagodnym, orzechowym smaku i wyrazistym, leśnym aromacie, który ulega wzmocnieniu podczas suszenia. Do celów konsumpcyjnych zbiera się zdrowe, świeże owocniki. Spożycie owocników starych, przejrzałych lub zaatakowanych przez pleśnie może prowadzić do zatruć nieswoistych wywołanych procesami rozkładu tkanek. Standardową praktyką przygotowania do spożycia jest poddawanie grzyba obróbce termicznej (gotowanie, duszenie, smażenie), natomiast suszenie stanowi metodę jego utrwalania.
Tradycje konsumpcji wykazują zróżnicowanie regionalne. W Polsce oraz w Europie Środkowo-Wschodniej borowik szlachetny jest podstawowym surowcem grzybowym, tradycyjnie suszonym i marynowanym. We Włoszech, gdzie znany jest jako porcino, stanowi tradycyjny składnik dań duszonych i smażonych. We Francji, pod nazwą cèpe, jest powszechnie wykorzystywany w gastronomii regionalnej, natomiast w kuchniach zachodnioeuropejskich jego popularność wzrosła pod wpływem tradycji kulinarnych południa kontynentu.
Siedlisko i występowanie
Borowik szlachetny występuje w strefie umiarkowanej i borealnej półkuli północnej, rosnąc w lasach iglastych, liściastych oraz mieszanych. Jako grzyb ektomikoryzowy tworzy związki z wieloma gatunkami drzew leśnych. Zgodnie z badaniami taksonomiczno-ekologicznymi do jego głównych partnerów mikoryzowych należą drzewa iglaste, w tym świerk (Picea), sosna (Pinus) i jodła (Abies), oraz drzewa liściaste, przede wszystkim dąb (Quercus), buk (Fagus), brzoza (Betula) i kasztan (Castanea).
Gatunek zasiedla zróżnicowane typy gleb leśnych, najczęściej o odczynie kwaśnym, w tym podłoża piaszczyste, piaszczysto-gliniaste i próchniczne, nierzadko w runie z mchami i borówkami. Występuje zarówno na nizinach, jak i w rejonach pagórkowatych oraz górskich.
Udokumentowane w zestawieniach zakresy obserwacji owocników w Europie Środkowej obejmują w Polsce okres od czerwca do listopada (VI–XI), natomiast w Czechach od czerwca do października (VI–X). Zakresy te wyznaczają ramy czasowe odnotowywania owocników w terenie w zależności od warunków pogodowych, bez bezpodstawnego wyróżniania miesięcznych szczytów czy regionalnych porównań częstości występowania.
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jadalność
- Jadalny — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Ocena kulinarna
- Bardzo smaczny
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Handel
- Dopuszczony do handlu
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Boletus edulis Bull.
- Dawne nazwy naukowe
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[21]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Zakres taksonu i ograniczenia oznaczania
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Ekologia i rozmieszczenie
Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
Kaulocystydy
Skórka kapelusza
Reakcje z odczynnikami
- Reakcja amyloidalna
- Reakcja amyloidalna strzępek w odczynniku Melzera jest ujemna. [13]
Zarodniki
- Barwa zarodnika w mikroskopie
- Zarodnik w obrazie mikroskopowym jest żółtobrązowy. [19]
- Krople wewnątrz zarodnika
- W zarodniku stwierdzono obecność kropli. [20]
- Długość zarodnika
- Zarodnik może mieć długość od 16 do 19 mikrometrów [19]; może mieć długość od 12 do 19,5 mikrometra. [16] [13] [23] [20]
- Iloraz długości i szerokości zarodnika
- Iloraz długości i szerokości zarodnika może wynosić od 2,5 do 3,9. [13] [20]
Iloraz długości i szerokości zarodnika może wynosić od 2,7 do 3,4. [19] - Kształt zarodnika
- Zarodnik może mieć kształt elipsoidalny, wydłużony elipsoidalny lub wrzecionowaty. [23] [16] [20]
Zarodnik jest wrzecionowaty u dojrzałych zarodników. [19] - Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką. [23] [16] [20]
W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką u dojrzałych zarodników. [19] - Grubość ściany zarodnika
- Zarodnik jest grubościenny. [19]
Materiał i metody badań
- Wyniki źródłowe — Długość komórki końcowej skórki kapelusza
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [20]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [19] - Wyniki źródłowe — Szerokość komórki końcowej skórki kapelusza
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [19]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [20] - Wyniki źródłowe — Długość zarodnika
- 14–18 µm [23]
12–18 µm [16]
13–16,5 µm [20]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [19]
12–19,5 µm [13] - Wyniki źródłowe — Iloraz długości i szerokości zarodnika
- 2,5–3,9 [13]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [19]
2,8–3,6 [20] - Wyniki źródłowe — Szerokość zarodnika
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [19]
4–7 µm [13]
4–6 µm [16]
4,5–7 µm [23]
4,3–5,5 µm [20]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [19]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [13]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [20]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [14]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [23]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [16]
Weryfikacja występowania — zakres i ograniczenia
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]- Przygotowanie materiału do mikroskopii
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [19]
Zakres opracowania
Przed ukończeniem rekord wymaga uzupełnienia lub rozliczenia.
- Poszukiwanie regionów występowania wymaga rozliczenia.
- Powiązania wcześniejszych ustaleń wymagają ponownego sprawdzenia.
- Nowe źródła wymagają rozliczenia informacji napotkanych podczas przeglądu.
Podstawa prawna i zakres oceny
Najważniejsze substancje i ich działanie
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Siedlisko i występowanie
Siedlisko, obszar i pora roku
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Czechy | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Polska | Dolny Śląsk — zakres nazwany przez źródło | VI–XI |
|
Źródła
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis