
Jedlý

Povolen k prodeji
Nastavte polohu, abyste viděli údaje pro svůj region.


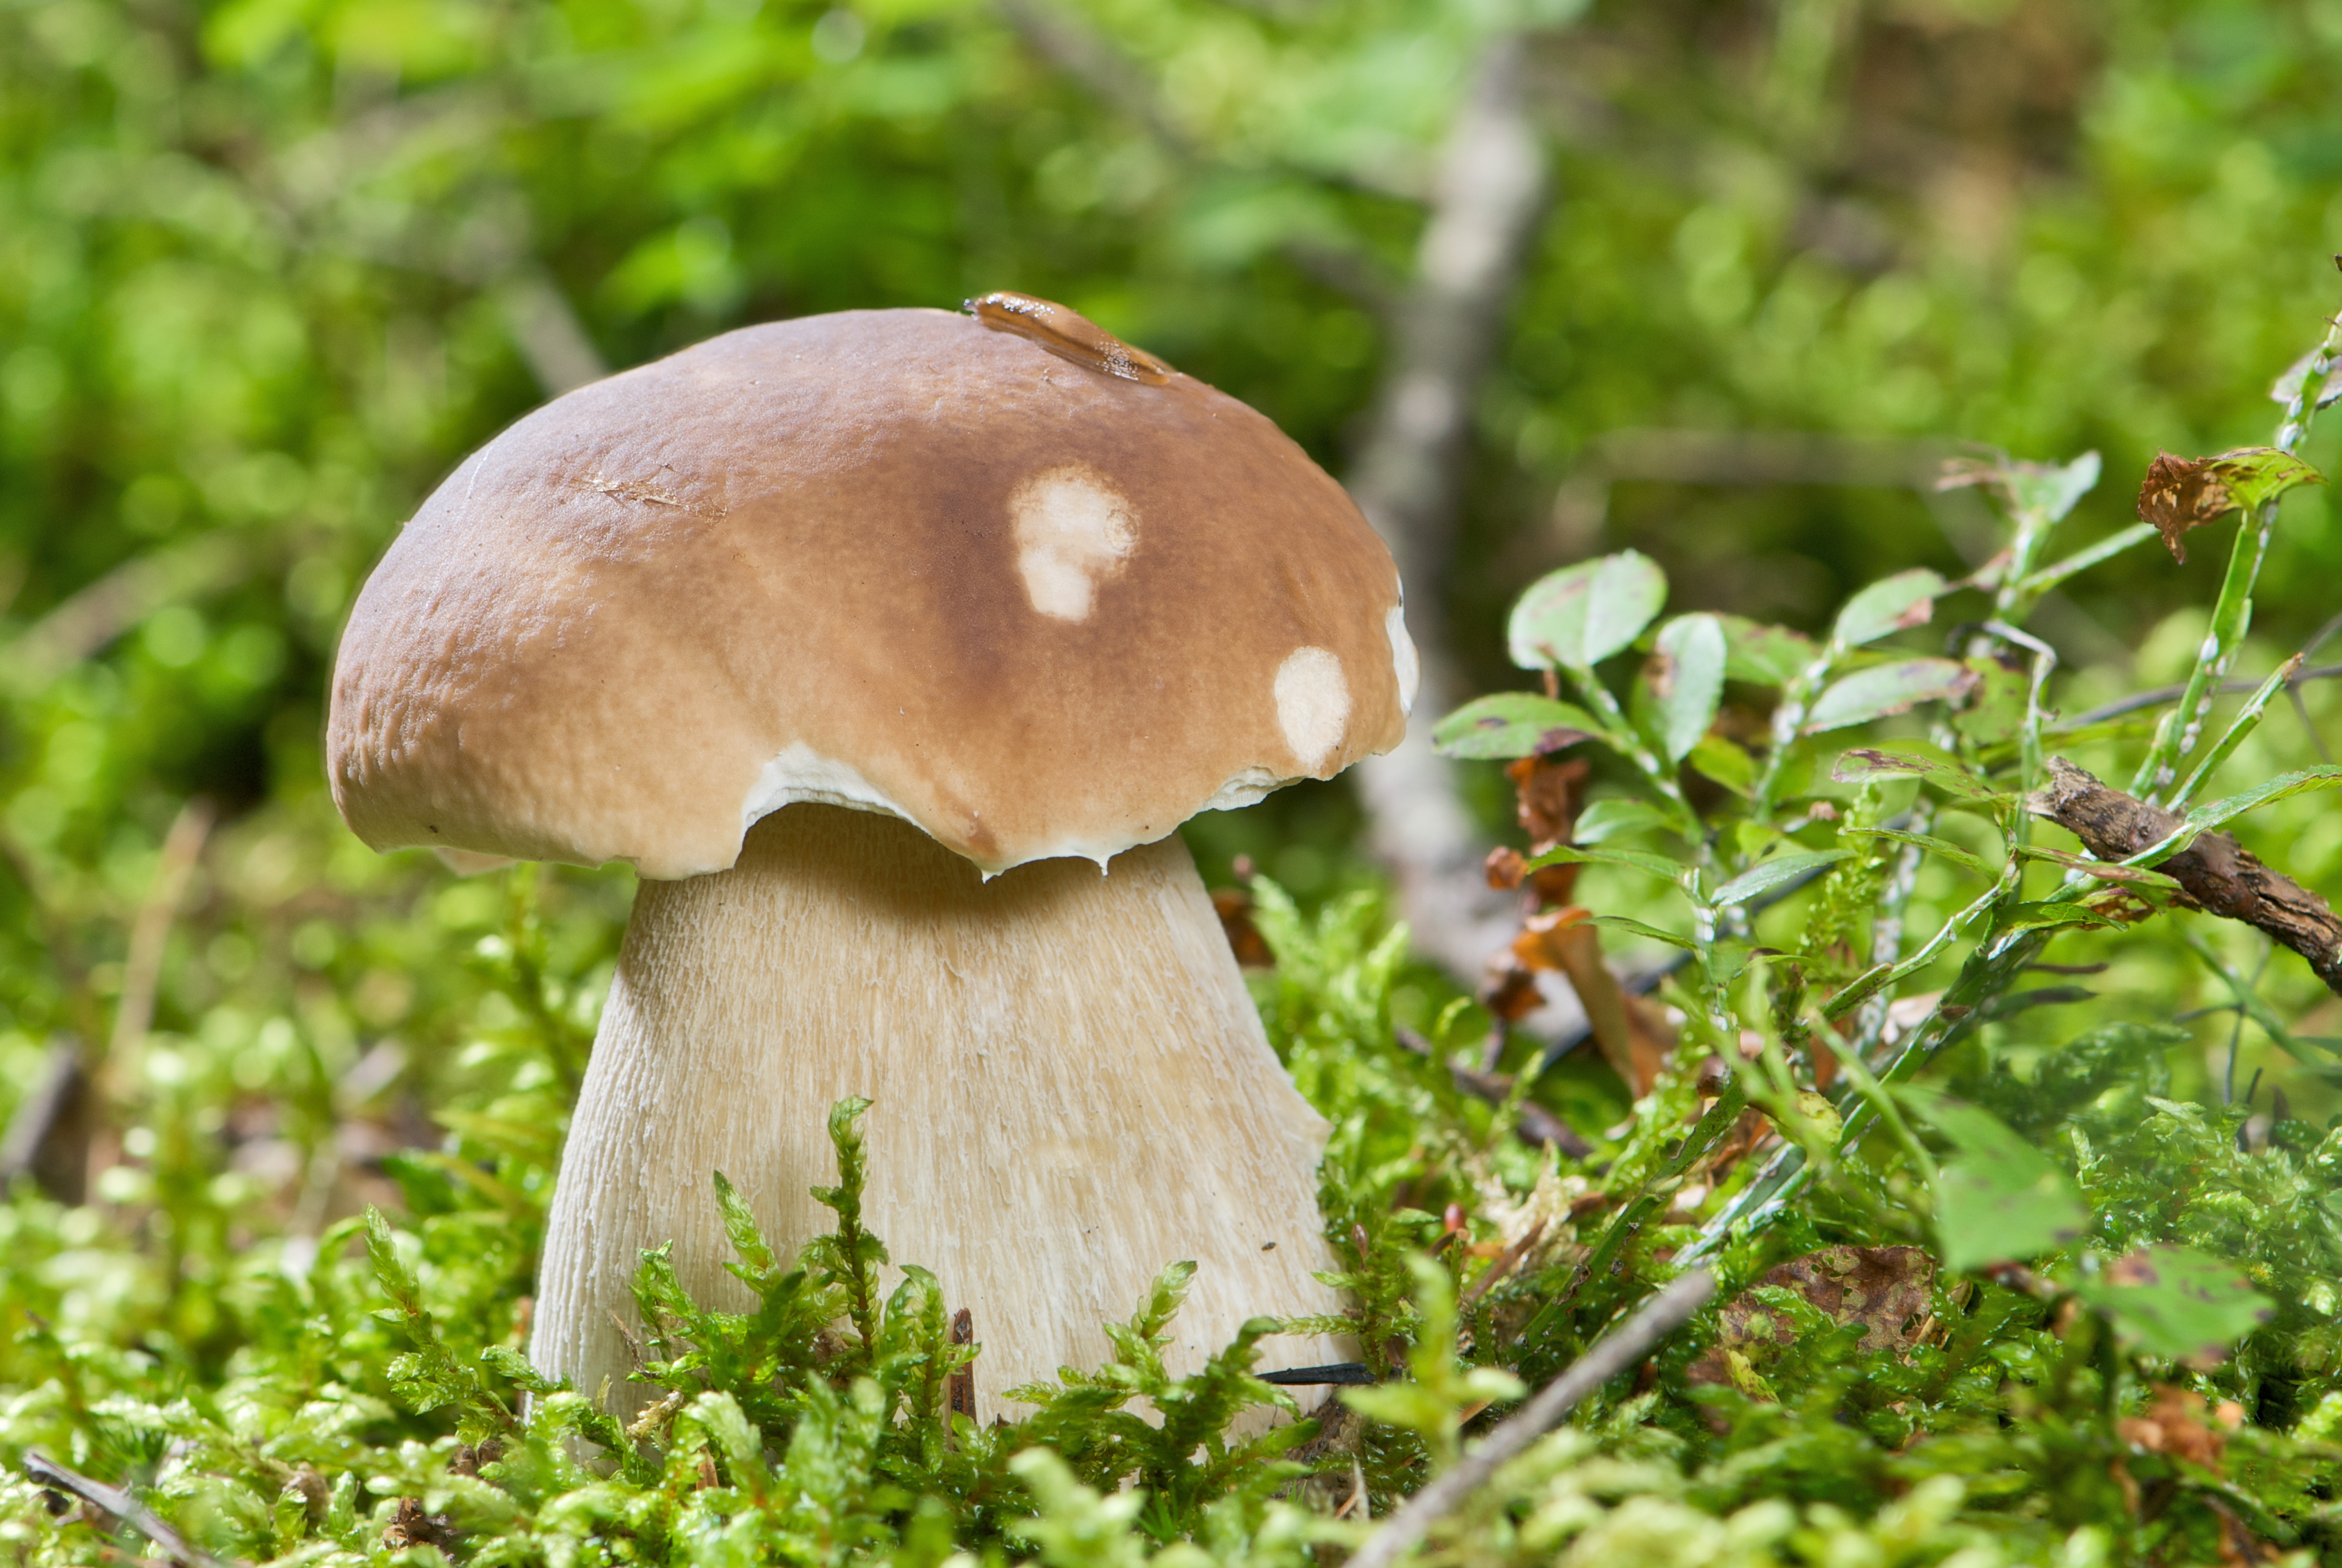


Hřib smrkový (Boletus edulis) je ceněná jedlá houba vyskytující se v jehličnatých, listnatých a smíšených lesích na kyselých půdách. Tvoří plodnice s masitým, hnědým kloboukem a třeněm pokrytým jemnou, bělavou nebo světle hnědou síťkou. Póry rourek jsou u mladých hub bílé a u dospělých mění barvu na žlutou až žlutoolivovou. Bílá dužnina nemění po rozkrojení barvu. Tento druh tvoří mykorhizu s různými stromy, mimo jiné se smrkem, jedlí, borovicí, bukem a břízou.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: vyklenutý.
u zralých plodnic: Tvar klobouku: plochý. - Reliéf povrchu klobouku
- Reliéf povrchu klobouku: hladký.
Reliéf povrchu klobouku: svraštělý. - Pokryv klobouku
- Pokryv klobouku: holá.
- Lesk povrchu klobouku
- za mokra: Lesk povrchu klobouku: lesklý.
- Lepkavost a slizkost klobouku
- za mokra: Lepkavost a slizkost klobouku: lepkavý.
za mokra: Lepkavost a slizkost klobouku: slizký. - Barva klobouku
- Barva klobouku: béžový.
Barva klobouku: hnědý.
Barva klobouku: tmavohnědý.
u zralých plodnic: Barva klobouku: tmavohnědý.
u mladých plodnic: Barva klobouku: světle hnědý.
Barva klobouku: světle hnědý.
Barva klobouku: světle okrový.
Barva klobouku: okrově hnědý.
u zralých plodnic: Barva klobouku: červenohnědý.
Barva klobouku: bílý (na okraji klobouku). - Průměr klobouku
- Průměr klobouku je 50–300 mm.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: rourky.
Rourky u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: přirostlý k třeni (rourky).
- Profil hymenoforu u třeně
- Profil hymenoforu u třeně: vykrojený u třeně (rourky).
- Oddělitelnost hymenoforu od klobouku
- Oddělitelnost hymenoforu od klobouku: snadno oddělitelný (rourky).
- Tvar pórů
- u mladých plodnic: Tvar pórů: okrouhlý.
u zralých plodnic: Tvar pórů: hranaté. - Barva pórů po poranění
- Barva pórů po poranění: beze změny barvy.
Barva pórů po poranění: beze změny barvy. - Barva rourek po poranění
- Barva rourek po poranění: beze změny barvy.
- Přirozená barva pórů
- u mladých plodnic: Přirozená barva pórů: bílý.
u zralých plodnic: Přirozená barva pórů: žlutý.
u zralých plodnic: Přirozená barva pórů: žlutoolivový.
u zralých plodnic: Přirozená barva pórů: olivově zelenožlutá.
u mladých plodnic: Přirozená barva pórů: bělavá.
u zralých plodnic: Přirozená barva pórů: žlutozelený. - Přirozená barva rourek
- u zralých plodnic: Přirozená barva rourek: krémový.
u zralých plodnic: Přirozená barva rourek: bledě žlutý.
u mladých plodnic: Přirozená barva rourek: bílý.
u zralých plodnic: Přirozená barva rourek: žlutoolivový.
u zralých plodnic: Přirozená barva rourek: olivově zelenožlutá.
u mladých plodnic: Přirozená barva rourek: bělavá.
u zralých plodnic: Přirozená barva rourek: žlutý.
u zralých plodnic: Přirozená barva rourek: žlutozelený.
Třeň a báze
- Tvar třeně
- u mladých plodnic: Tvar třeně: soudkovitý.
u zralých plodnic: Tvar třeně: kyjovitý.
Tvar třeně: válcovitý.
Tvar třeně: kyjovitý.
Tvar třeně: zužující se k bázi. - Báze třeně
- Báze třeně: kyjovitý.
Báze třeně: ztlustlá. - Barva třeně
- Barva třeně: bělavá.
Barva třeně: světle hnědý. - Reliéf povrchu třeně
- v horní části třeně: Reliéf povrchu třeně: síťovitá.
- Délka třeně
- Délka třeně: 20–300 mm.
- Průměr třeně
- Průměr třeně: 15–120 mm.
- Barva síťky na třeni
- v horní části třeně: Barva síťky na třeni: bělavá.
v horní části třeně: Barva síťky na třeni: světle hnědý.
v horní části třeně: Barva síťky na třeni: bílý.
Dužnina
- Barva dužniny
- Barva dužniny: bílý.
Barva dužniny: červenohnědý (dužnina klobouku, pod pokožkou).
Barva dužniny: narůžovělý (dužnina klobouku, pod pokožkou).
Barva dužniny: nahnědlý (dužnina u báze třeně). - Pevnost dužniny
- u mladých plodnic: Pevnost dužniny: pevný.
u zralých plodnic: Pevnost dužniny: měkký. - Chuť dužniny
- Chuť dužniny: slabý.
- Pružnost dužniny
- u mladých plodnic: Pružnost dužniny: pružný.
- Struktura dužniny
- u zralých plodnic: Struktura dužniny: vatovitý.
u starých plodnic: Struktura dužniny: houbovitý. - Barva dužniny po poranění
- Barva dužniny po poranění: beze změny barvy.
Barva dužniny po poranění: beze změny barvy.
Barva dužniny po poranění: beze změny barvy. - Vůně dužniny
- Vůně dužniny: houbový, slabý.
Vůně dužniny: slabý. - Chuťový tón dužniny
- Chuťový tón dužniny: ořechový.
Kde a kdy roste
- Stanoviště
- Stanoviště: jehličnatý les.
Stanoviště: listnatý les.
Stanoviště: smíšený les. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: ve skupinách. - Četnost výskytu
- Četnost výskytu: hojný.
- Doba růstu
- Plodnice se objevují od června do listopadu.
- Oblast výskytu
Jedlost a kuchyně
- Jedlost
- Jedlý
- Kulinářské hodnocení
- Velmi chutný
Právo
Předpisy pro lokalitu: Polsko
- Ochrana
- V Polsku Boletus edulis nepodléhá zákonné druhové ochraně.
- Obchod
- Povolen k prodeji
Možná záměna
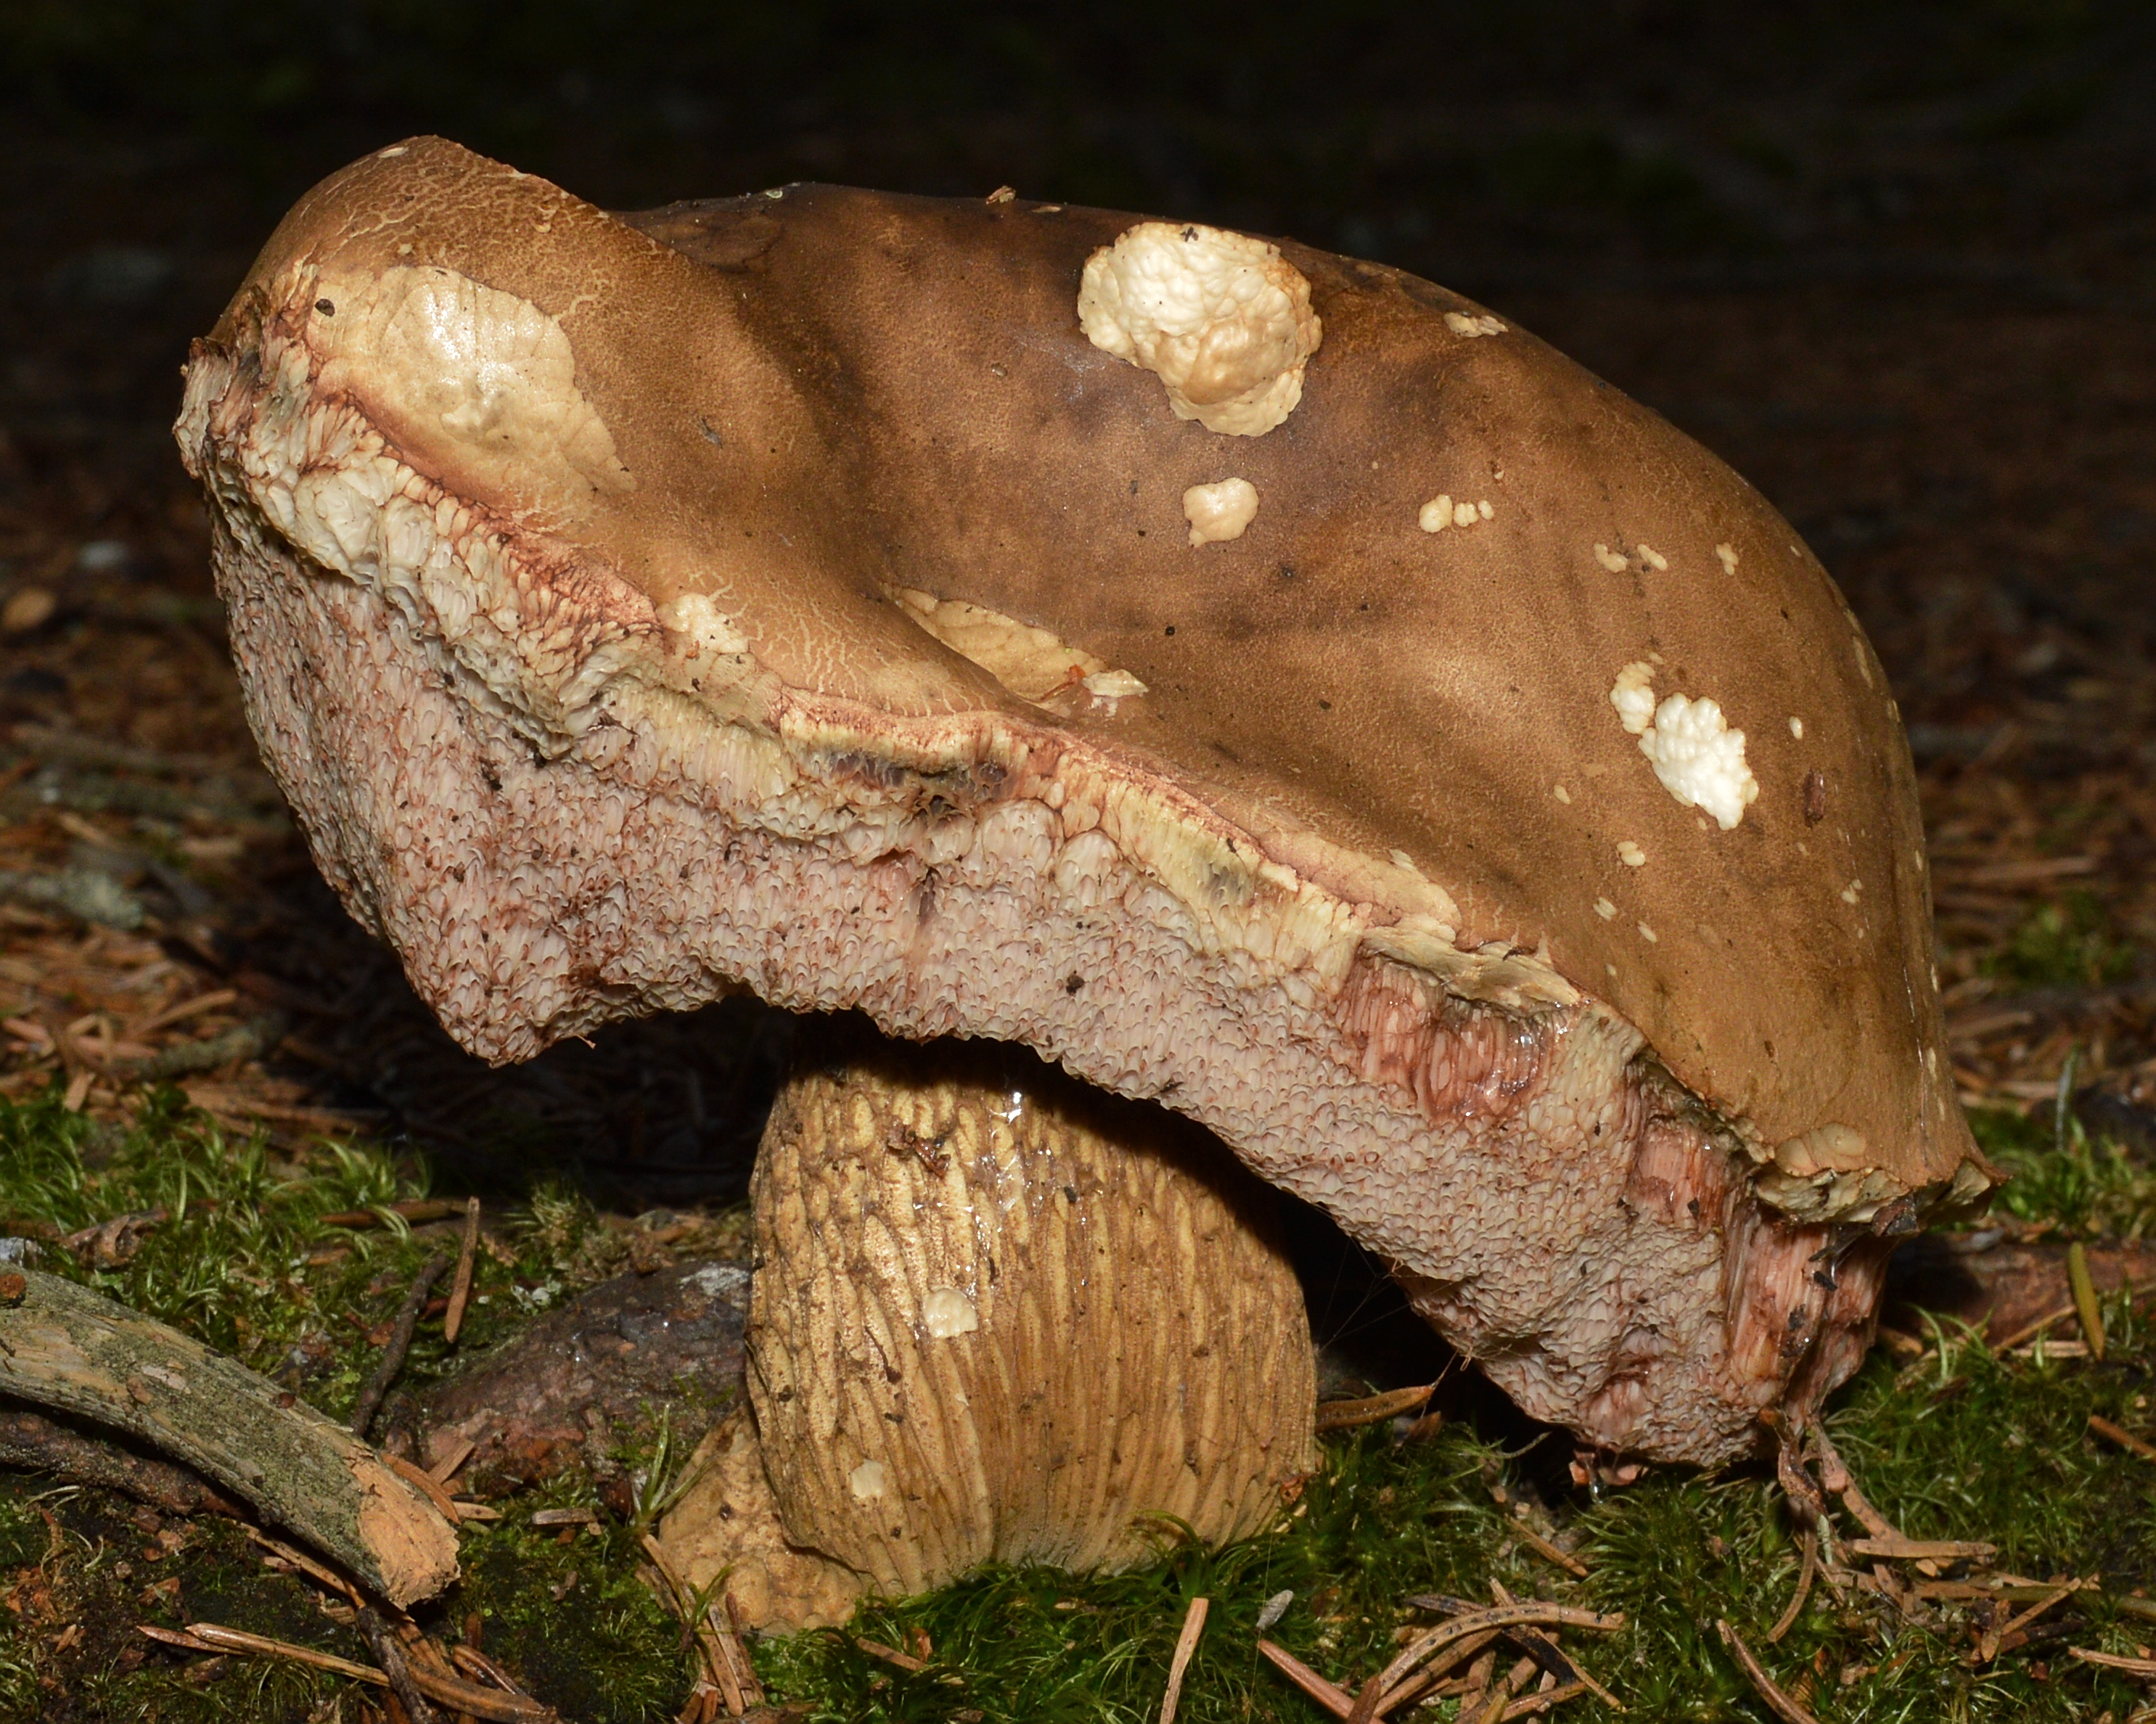
Tylopilus felleus
Hlavní rozdíly
Hřib žlučník (Tylopilus felleus) má u mladých exemplářů bělavé póry, kvůli čemuž bývá zaměňován s hřibem smrkovým. Během dozrávání se však jeho póry stávají špinavě růžovými, síťka na třeni je hrubá, tmavá a vystouplá a klobouk zůstává matný a sametový. Dužnina hřibu žlučníku se vyznačuje intenzivní hořkostí, kterou neodstraní vaření ani sušení, takže i jediná plodnice zkazí chuť celého pokrmu.
Hřib smrkový (Boletus edulis) připomíná mladý hřib žlučník habitem a hnědým kloboukem. Liší se však světlejším, zpočátku bílým třeněm pokrytým jemnou světlou síťkou (patrnou hlavně v jeho horní části). Rourky a póry hřibu smrkového navíc s věkem mění barvu z bílé na žlutozelenou a olivově zelenou, zatímco u hřibu žlučníku růžoví.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Zdroj fotografie · Public domainBoletus reticulatus
Hlavní rozdíly
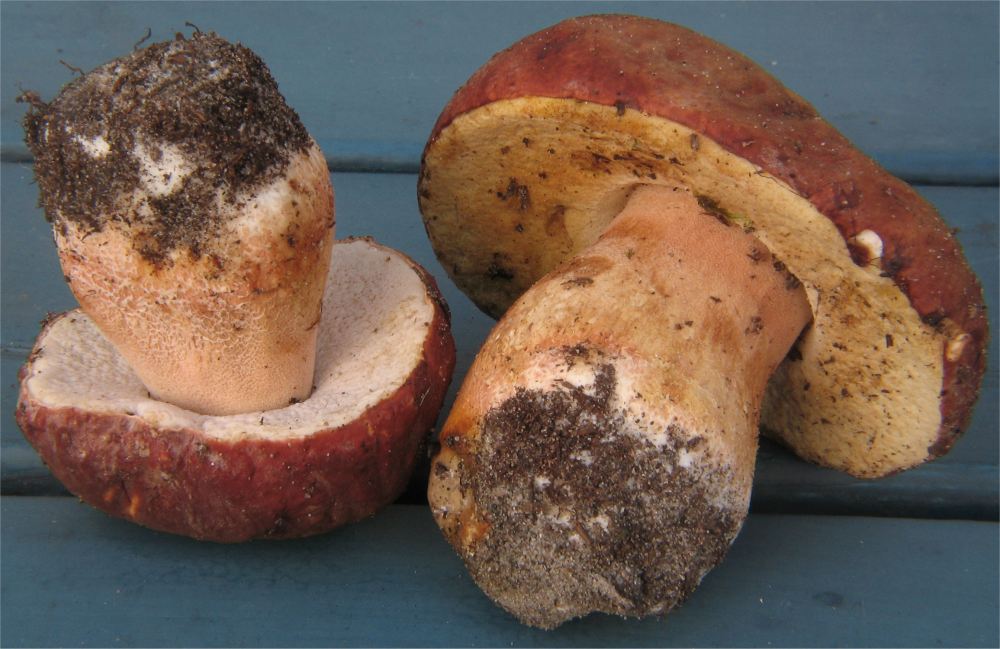
Hřib dubový (Boletus reticulatus) se vyznačuje kloboukem s matným, sametovým nebo dlouho ojíněným povrchem, který během sucha často políčkovitě puká, a výraznou síťkou pokrývající často téměř celý třeň. Vyskytuje se hlavně pod buky a duby a objevuje se v sezóně obvykle dříve než hřib smrkový. Vzhledem k proměnlivosti vlastností povrchu a rozsahu síťky u obou druhů samotný rozsah oček na třeni ne vždy dovoluje jejich jednoznačné rozlišení.
Hřib smrkový (Boletus edulis) má obvykle hladší povrch klobouku, který se za vlhkého počasí stává lepkavým a mazlavým, a na jeho okraji bývá často patrný úzký, světlejší lem. Síťka na třeni hřibu smrkového bývá zpravidla jemnější a omezená především na jeho horní část. U hřibu dubového je klobouk obvykle suchý, plstnatý a náchylný k pukání a síťka na třeni světlejší a výraznější, ačkoli samotná rozlehlost síťky nepředstavuje spolehlivé rozhodující kritérium.
Boletus pinophilus
Hlavní rozdíly
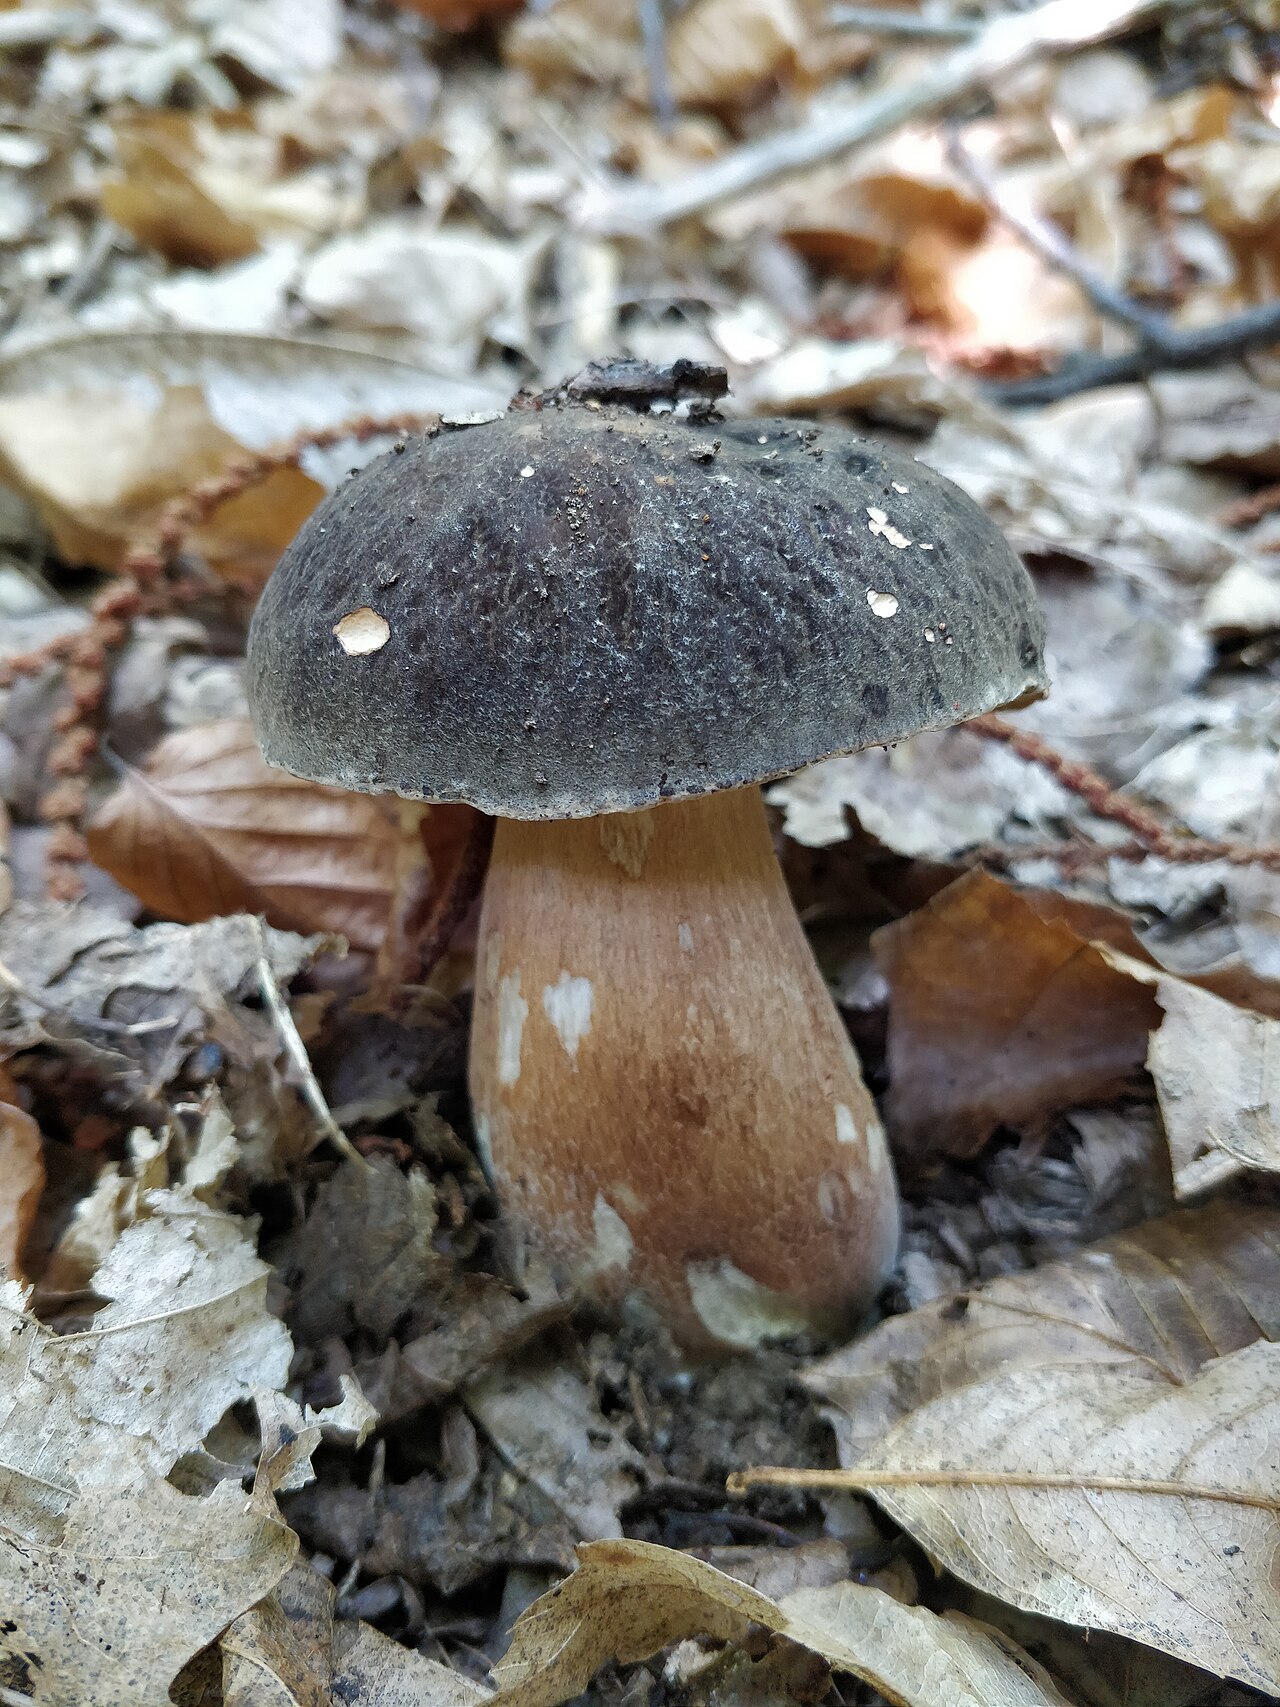
Hřib borový (Boletus pinophilus) se vyznačuje tmavým, červenohnědým nebo téměř černohnědým kloboukem a roste převážně ve vazbě na borovice. V mikroskopické stavbě vyniká tlustou, želatinizovanou pokožkou a koncovými elementy o šířce až 27 µm, které obsahují červenohnědý, nástěnný inkrustující pigment, jenž se rozpouští v hydroxidu draselném (KOH).
Hřib smrkový (Boletus edulis) mívá klobouk v odstínech od světle hnědé po tmavě hnědou, někdy s nažloutlým nebo načervenalým tónem, jeho povrch je však lysý, mastný a síťka na třeni je obvykle jemná a omezená na horní část. Mikroskopicky mají koncové elementy pokožky B. edulis šířku 4–19 µm a barvivo se nachází uvnitř buněk. Přítomnost načervenalého odstínu ani blízkost borovic nejsou výhradními znaky pro B. pinophilus, protože B. edulis roste rovněž v borových lesích na chudých, kyselých píscích.
Boletus aereus
Hlavní rozdíly
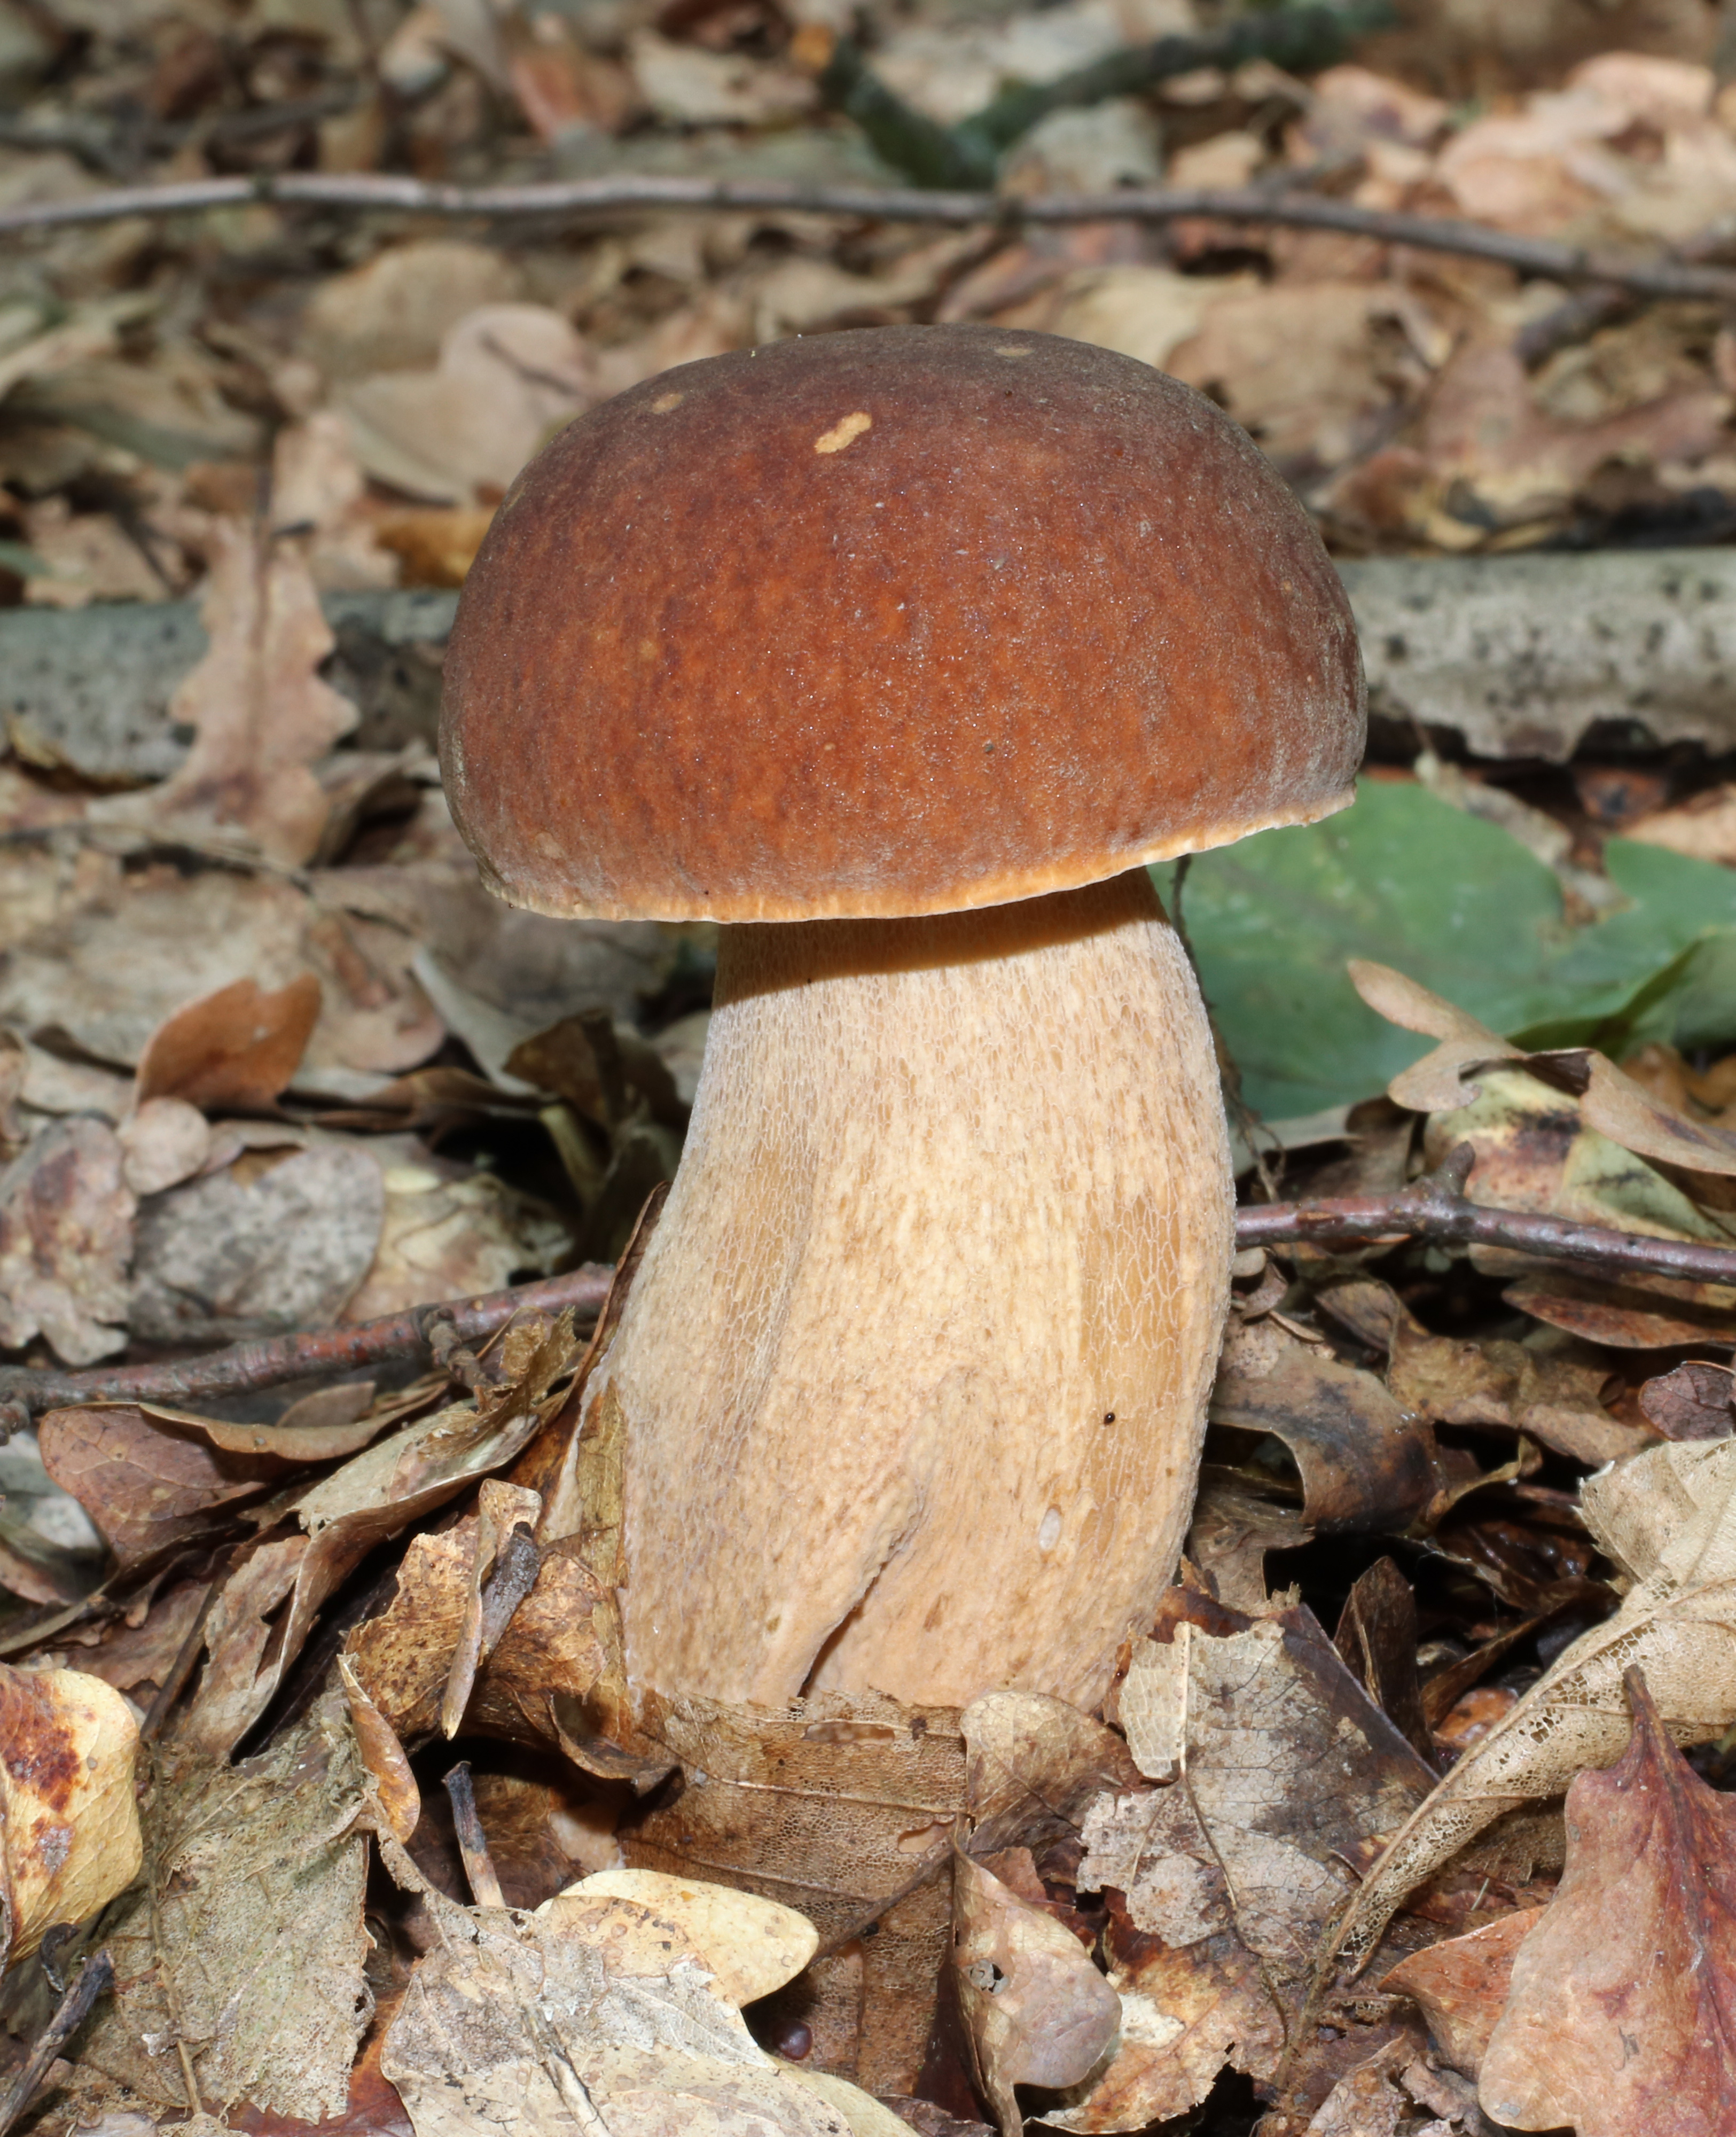
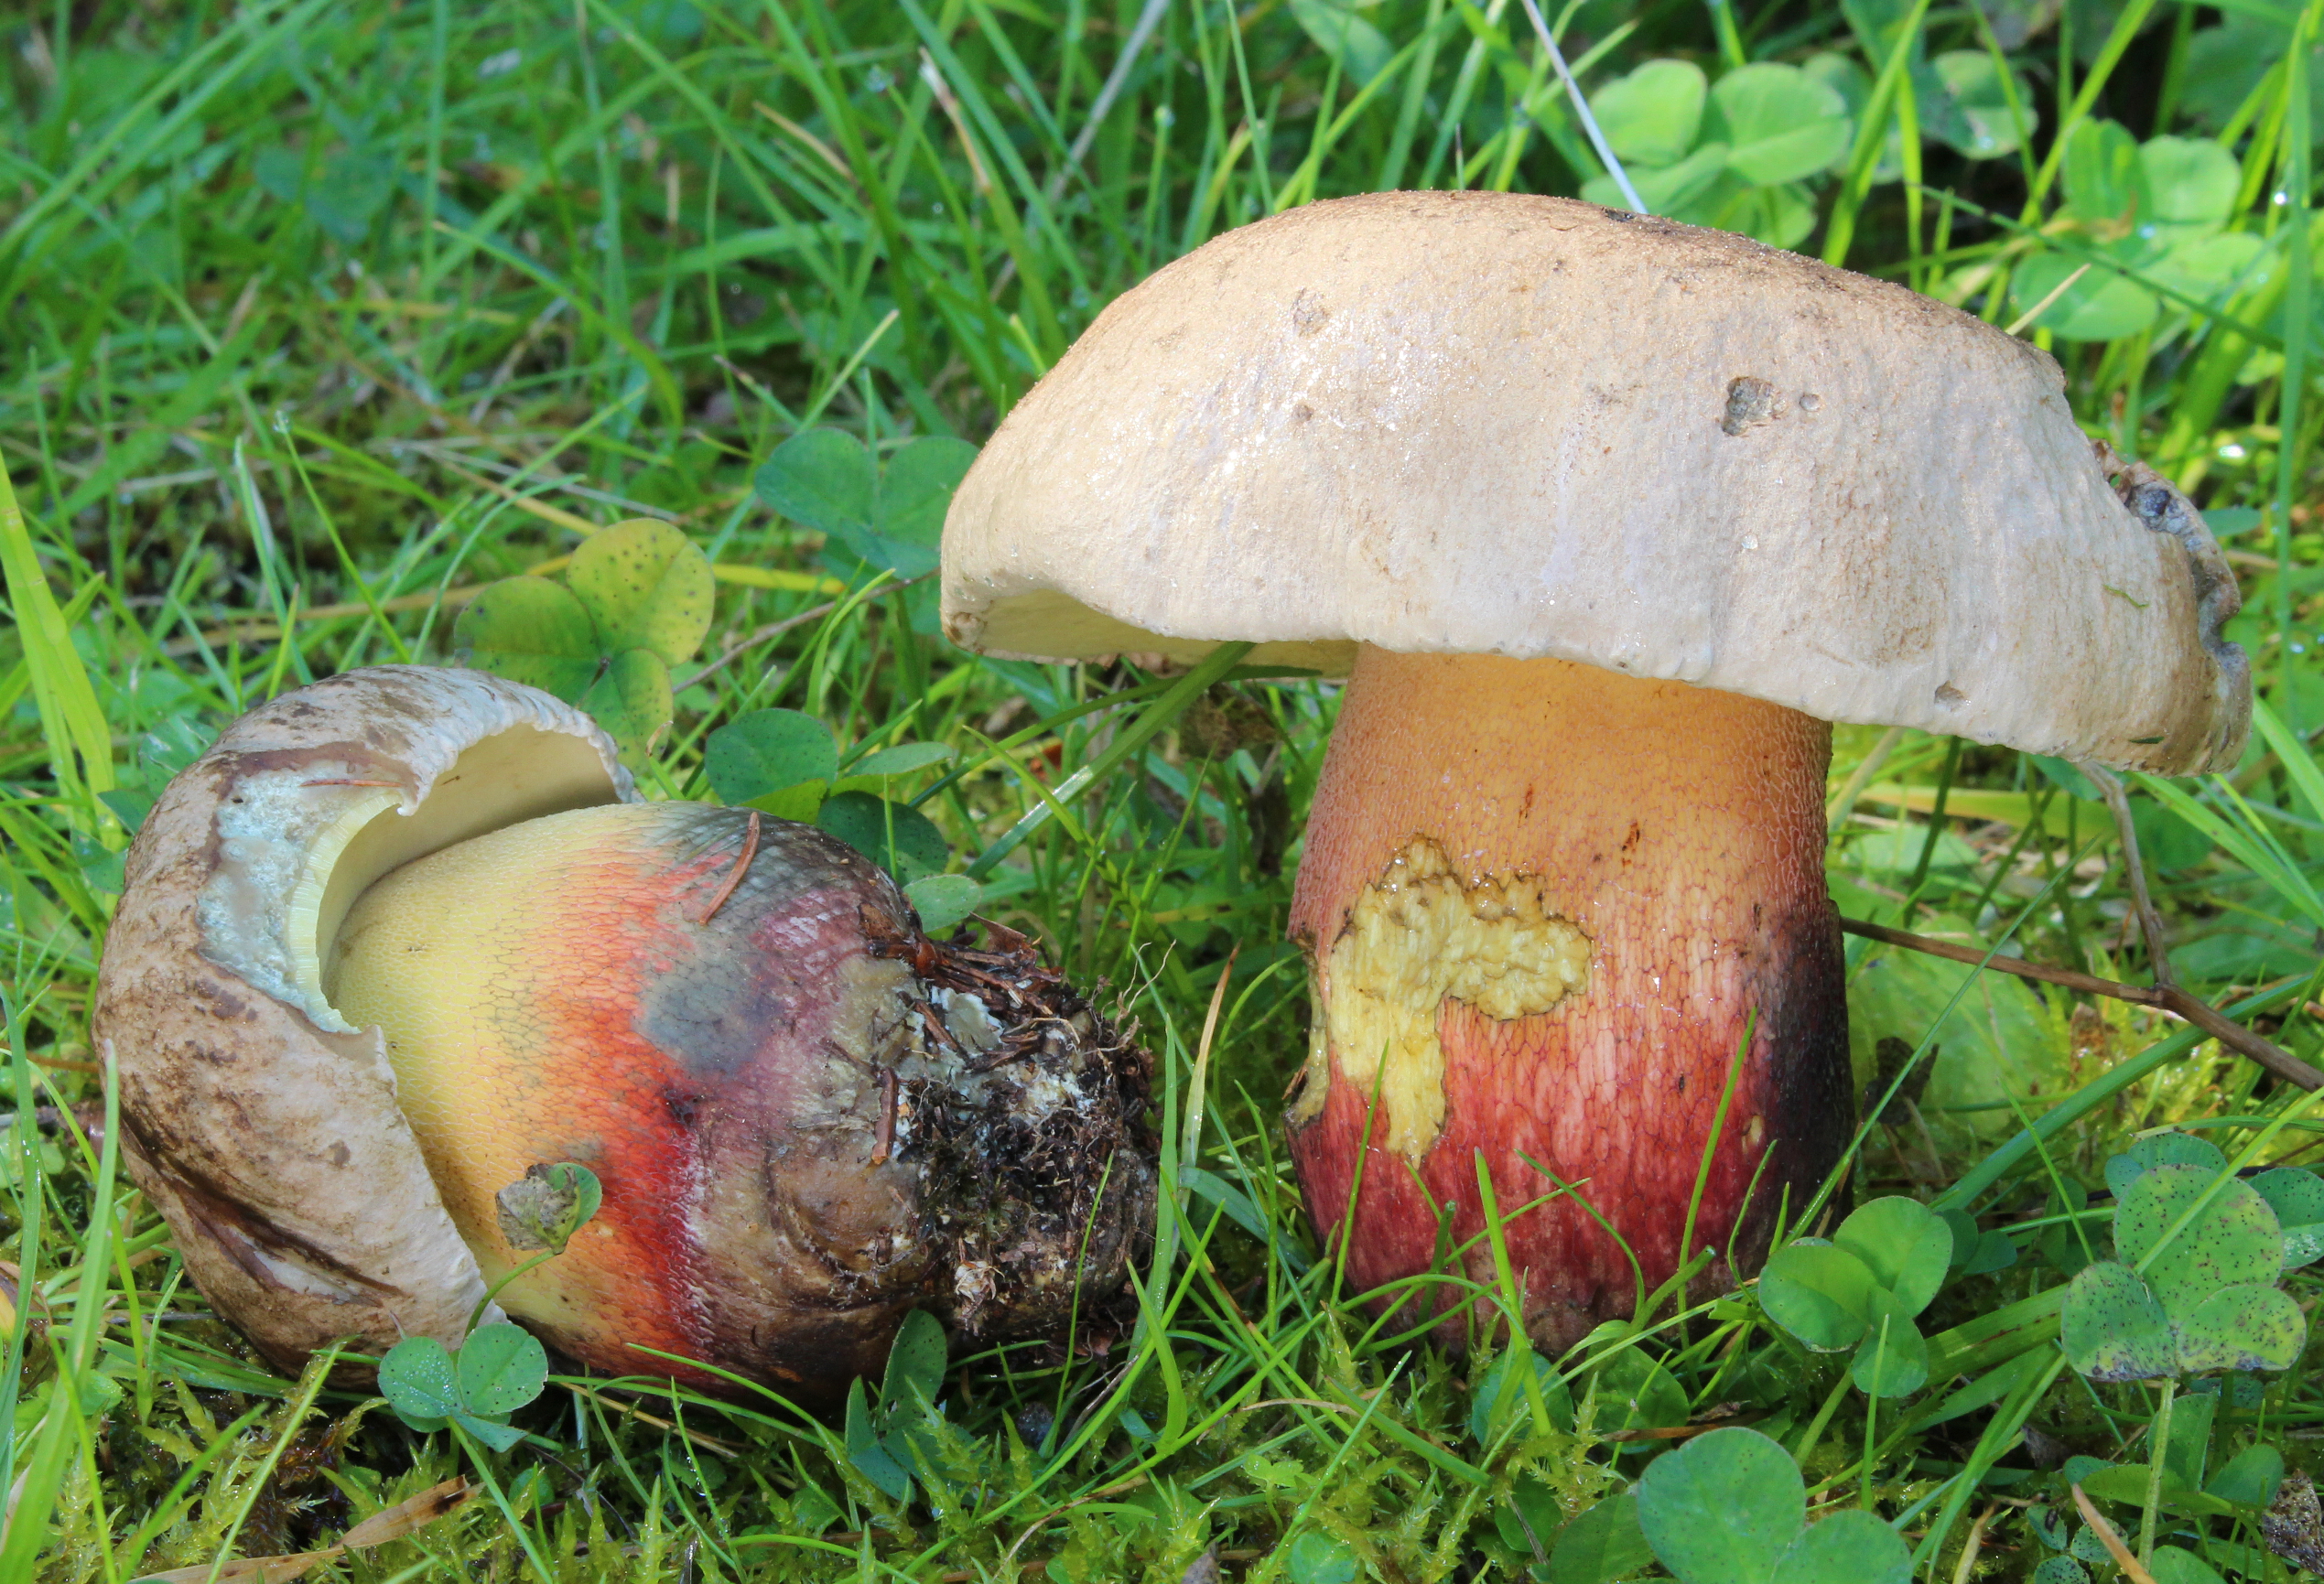
Hřib smrkový (Boletus edulis) se liší hladkou, za vlhkých podmínek na dotek mastnou pokožkou klobouku, širší paletou světlejších a tmavších odstínů hnědé a bělavou síťkou přítomnou obvykle v horní polovině třeně (vzácněji sestupující níže). Mikroskopicky mají koncové elementy pokožky klobouku u B. edulis šířku 4–19 µm, zatímco u B. aereus je klobouk suchý, jemně plstnatý a velmi tmavý, ačkoli jednotlivé znaky zbarvení se mohou překrývat.
Hřib bronzový (Boletus aereus) se vyskytuje v teplých listnatých lesích, převážně dubových, také na vápencových půdách, vzácněji pod kaštanovníky. Má velmi tmavý, suchý, jemně plstnatý klobouk. Pod mikroskopem dosahují koncové elementy jeho pokožky šířky až 11 µm a obsahují jemnozrnný vnitrobuněčný pigment.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Zdroj fotografie · CC BY 3.0Caloboletus calopus
Hlavní rozdíly
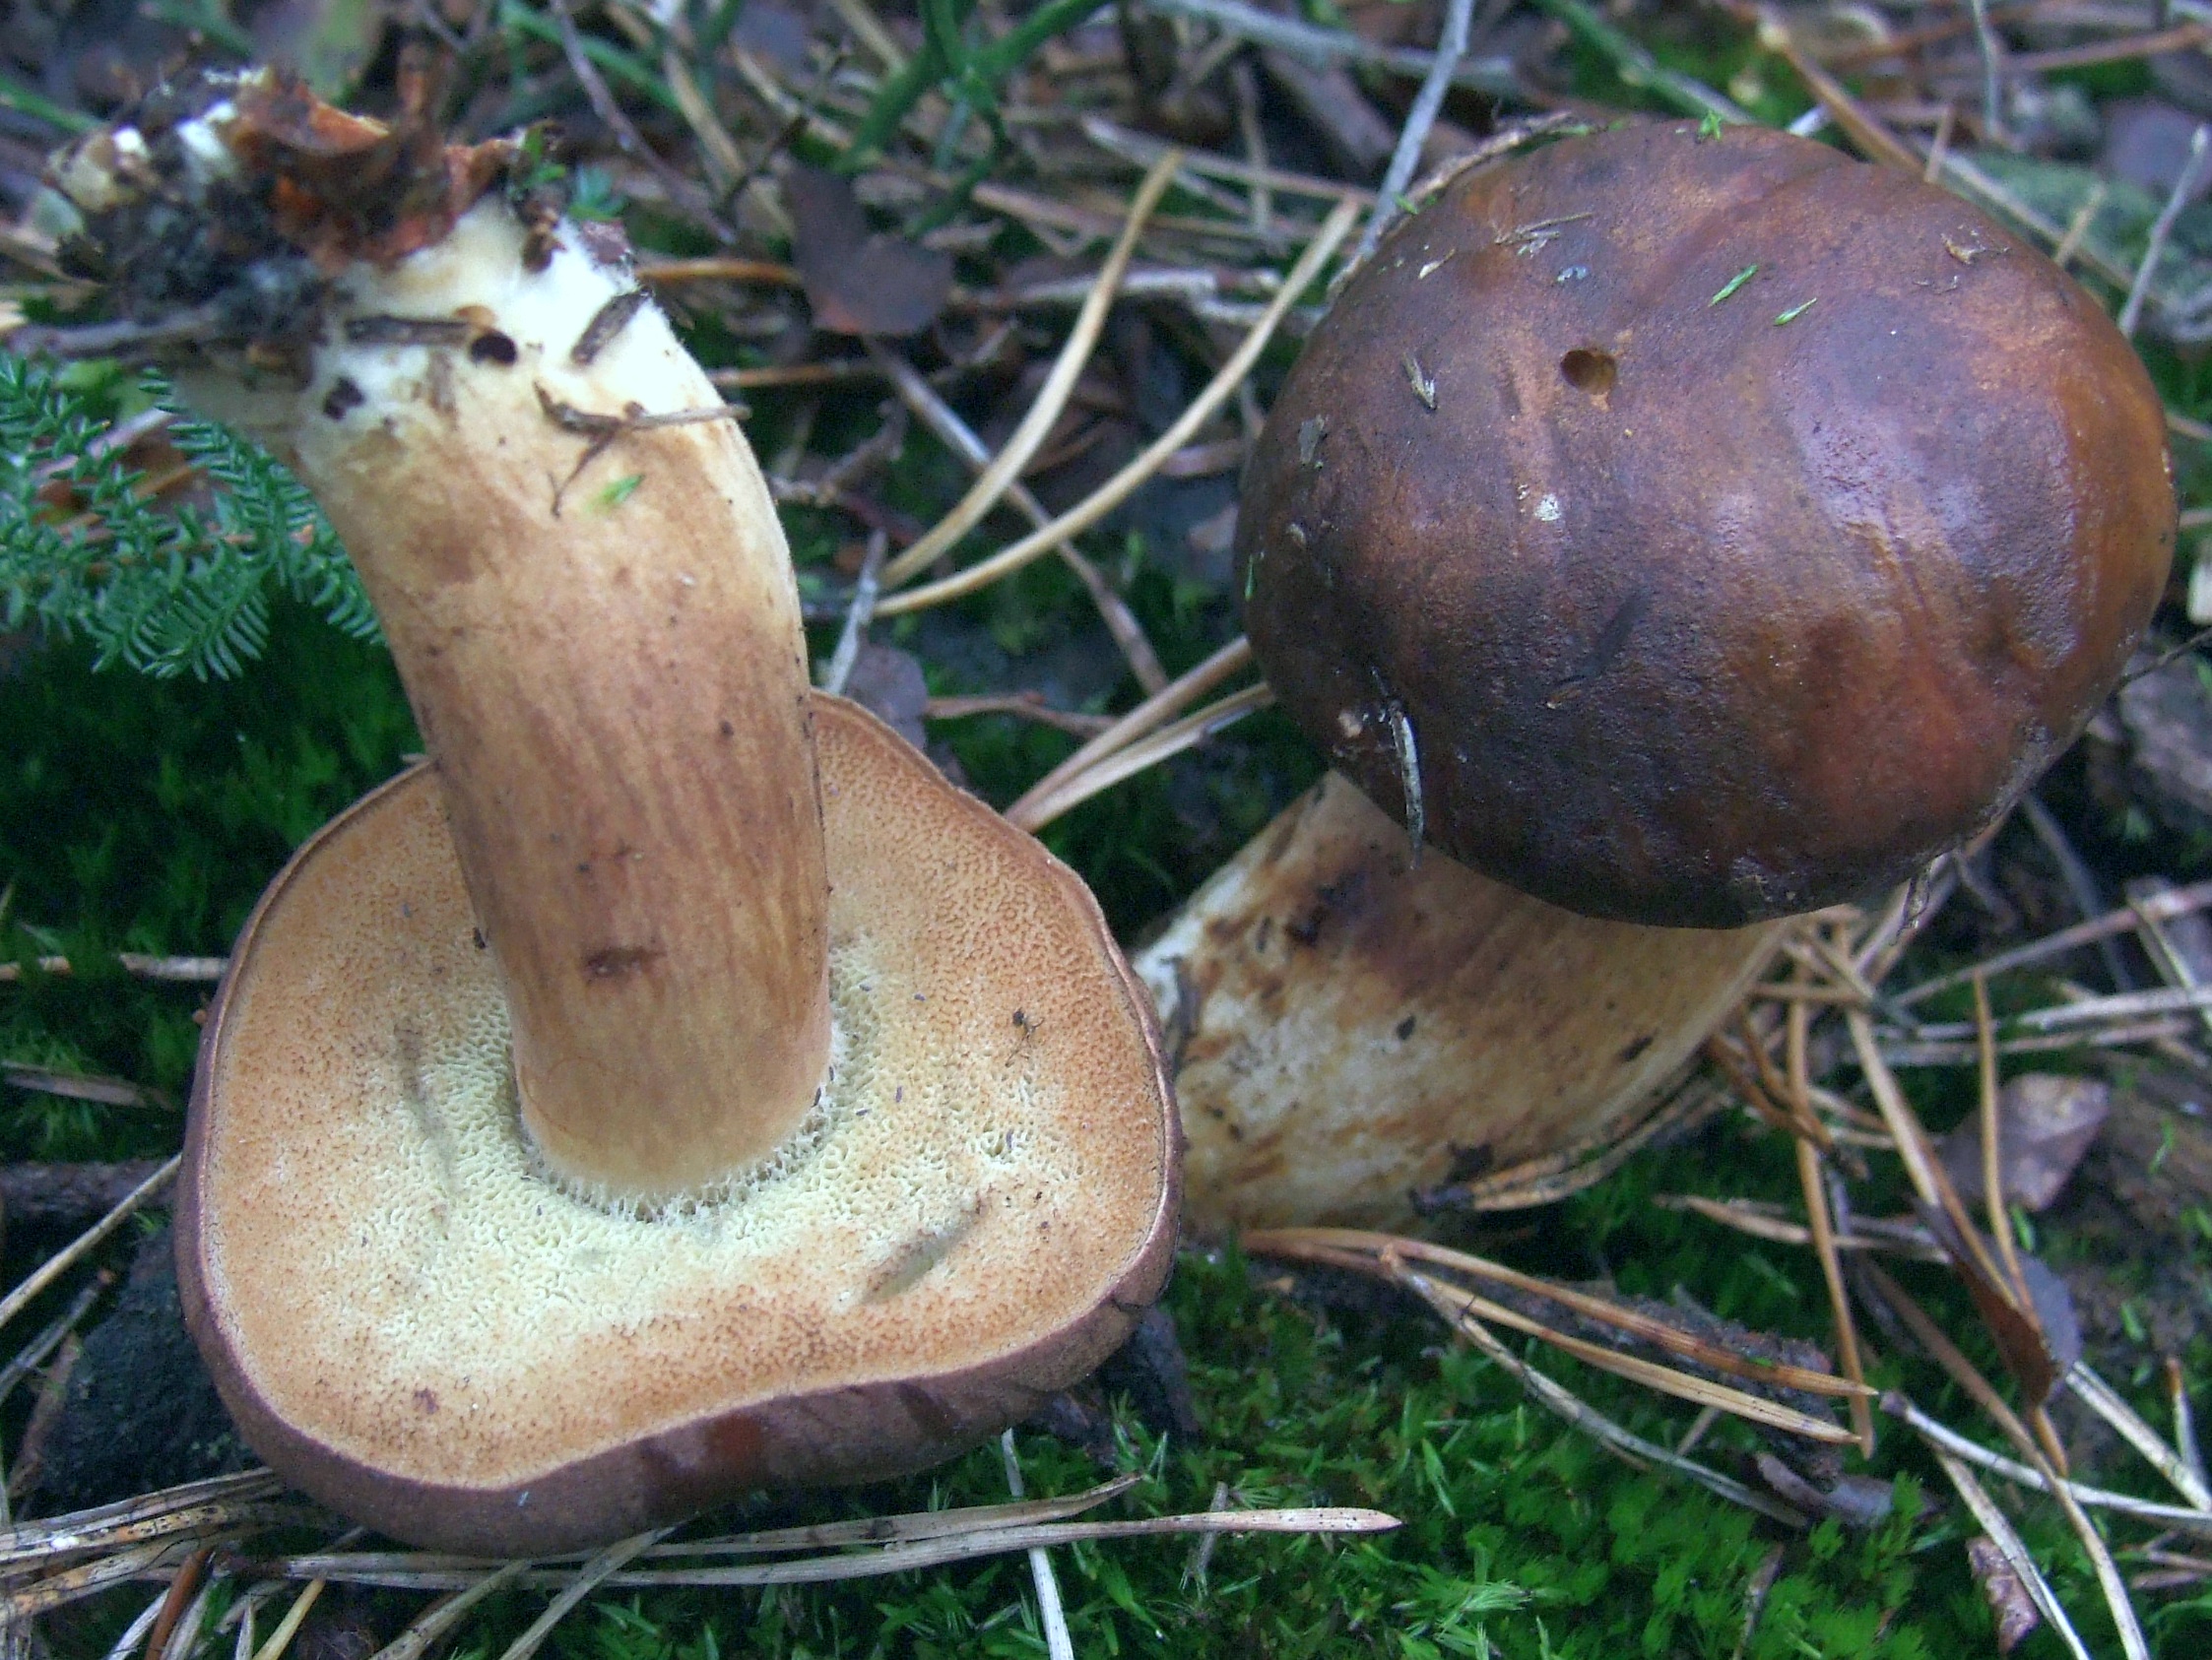
Záměna s hřibem smrkovým (Boletus edulis) je v terénu možná především při zběžném pohledu shora na mladé plodnice. Hřib smrkový se odlišuje hnědým kloboukem, bílými až žlutozelenými rourkami, které po pomačkání nemodrají, světlým třeněm bez stopy jasně červené barvy a mírnou, příjemnou chutí.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Zdroj fotografie · CC BY-SA 4.0Imleria badia
Hlavní rozdíly
Hřib hnědý (Imleria badia) a hřib smrkový (Boletus edulis) jsou oblíbené jedlé houby. Hřib smrkový má třeň se světlou síťkou a póry zpočátku bílé, s věkem žluté až žlutoolivové, které pod tlakem nemění barvu. Jeho dužnina zůstává po rozkrojení bílá. Hřib hnědý má třeň nahnědlý, bez síťky, a póry po stlačení zřetelně modrají. Dužnina hřibu hnědého po rozkrojení modrá, zejména v klobouku a nad rourkami.
FAQ
Modrá hřib smrkový po rozkrojení?
Ne. Dužnina hřibu smrkového nemění po rozkrojení barvu – nemodrá ani netmavne při kontaktu se vzduchem. Absence změny zbarvení na řezu je důležitý diagnostický znak.
Může být klobouk hřibu kluzký?
Ano. Za vlhkého počasí bývá klobouk kluzký, lepkavý nebo slizký a lesklý, a u mladých plodnic mírně lepkavý. Samotný povrch klobouku bývá hladký nebo vrásčitý.
Má každý hřib smrkový tmavohnědý klobouk?
Ne. Barva klobouku bývá proměnlivá: od světle hnědé přes oříškovou po tmavohnědou a červenohnědou. V širokém pojetí druhu se zohledňují také formy s ještě světlejším zbarvením.
Je pravák a hřib smrkový to samé?
Pravák je hovorový název pro hřib smrkový, avšak v běžném užití bývá vztahován také k několika podobným druhům hřibů sbíraných houbaři.
Proč má hřib jednou bílé a jindy žlutoolivové póry?
Záleží to na zralosti plodnice. U mladých hub jsou póry bílé, zatímco u zralých se stávají žlutými až žlutoolivovými. S věkem se drobné, okrouhlé póry navíc stávají hranatými.
Zesiluje sušení vůni hřibu?
Ano. Čerstvé plodnice mají slabou houbovou vůni, zatímco sušení aroma zřetelně zesiluje. Usušený hřib voní podstatně silněji a představuje tradiční přísadu do polských polévek a pirohů.
Jak velký může být klobouk hřibu smrkového?
V polských zdrojích uvádí Snowarski průměr 60–250 mm a český Tejkal 50–250 mm. Práce Muñoze a Korhonena zase u hřibu smrkového zaznamenávají klobouky dosahující až 300 mm (30 cm).
Jak rozeznat hřib smrkový od hřibu žlučníku?
Hřib žlučník má tmavou, hrubou síťku na třeni a zralé póry v růžovém odstínu. U hřibu je síťka drobná, bělavá nebo světle hnědá a zralé póry jsou žluté až žlutoolivové.
Kdy lze najít hřib smrkový?
Záleží to na regionálním pojetí. V polských zdrojích se období výskytu vymezuje jako léto a podzim, zatímco v Česku houba plodí v opakujícím se rozmezí od června do října.
Pod jakými stromy roste hřib smrkový?
Hřib smrkový roste v jehličnatých, listnatých i smíšených lesích. Tvoří mykorhizní vazby s různými stromy: zdroje zde uvádějí smrk, jedli, borovici, buk a břízu.
Nadšenec
Spodní strana klobouku
- Délka rourek
- Délka rourek: 5–30 mm.
Názvy a historie
- Platné vědecké jméno
- Boletus edulis Bull.
- Další jména
- hřib smrkový
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách klobouk zvedněte a prohlédněte si otisk.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: hnědý. Barva výtrusného prachu: zelený.
- Odstín výtrusného prachu
- Odstín výtrusného prachu: tmavě olivově hnědý. Odstín výtrusného prachu: hnědoolivový.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: vřetenovitý. Tvar výtrusu: protáhle elipsoidní. Tvar výtrusu: vřetenovitý. Tvar výtrusu: vřetenovitý. Tvar výtrusu: elipsoidní.
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 12–19,5 µm, šířka 4–7 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
- Vápenitost půdy
- Vápenitost půdy: nevápnitá.
- Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: smrky (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: jedle (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: borovice (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: buky (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: bříza (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: smrk ztepilý (obecný seznam partnerů).
Mimokulinární využití
V oblasti mimokulinářského využití hřibu smrkového vědecké zdroje (mj. publikace v IMA Fungus, doi:10.1186/s43008-024-00156-7) zaznamenávají ojedinělé lokální etnomykologické zprávy. V terénních výzkumech tradičních znalostí o houbách bylo zdokumentováno svědectví o lidové praxi lokální aplikace plodnic tohoto druhu při kožních onemocněních.
Tento záznam představuje výhradně popis dochovaného etnomykologického vyprávění a prvek místního bylinkářského folklóru bez vědeckého potvrzení biologické účinnosti nebo léčebného působení. Současná mykologická a etnobiologická literatura přistupuje k této zmínce pouze jako ke svědectví o dřívějších zvyklostech, aniž by formulovala jakákoli terapeutická či lékařská doporučení nebo aplikační receptury. Jakékoli mimokulinářské využití hřibu smrkového mělo ve srovnání s jeho běžným potravinářským využitím okrajový a historický charakter.
Historie a kultura
Hřib smrkový zaujímá zásadní místo v evropské kultuře a lesní tradici a je všeobecně považován za nejprestižnější houbu ve sběračských tradicích. V historii vědecké mykologie bylo klíčovým momentem formální popsání a přidělení druhového jména Boletus edulis francouzským přírodovědcem Jeanem Baptistou Bulliardem v roce 1782.
V polské literární tradici byl motiv hřibu zvěčněn ve III. knize eposu „Pan Tadeáš“ od Adama Mickiewicze („Námluvy“), kde se v popisu houbaření objevuje zmínka o hřibu označovaném v písni jako „plukovník hub“. Tento odkaz však nelze přímo ztotožňovat se současným striktním taxonomickým pojetím druhu, nýbrž s dřívějším kulturním vnímáním ušlechtilých lesních hub.
Význam této houby v lidové kultuře středovýchodní Evropy potvrzují moderní etnobiologické výzkumy, mj. analýzy tradic prováděné na ukrajinsko-rumunském pomezí. Poukazují na mimořádnou trvalost povědomí o hřibu v kolektivní paměti místních komunit. Houba má také silnou sváteční a obřadní symboliku a tvoří tradiční součást štědrovečerní večeře jako symbol sepětí s přírodou.
Jedlost a bezpečnost
Hřib smrkový je všeobecně ceněná jedlá houba s mírnou, oříškovou chutí a výraznou lesní vůní, která se sušením ještě zesiluje. Pro konzumaci se sbírají zdravé, čerstvé plodnice. Požití starých, přezrálých nebo plísněmi napadených plodnic může vést k nespecifickým otravám způsobeným procesy rozkladu pletiv. Standardní praxí přípravy ke konzumaci je tepelná úprava houby (vaření, dušení, smažení), zatímco sušení představuje metodu jejího uchování.
Tradice konzumace vykazují regionální odlišnosti. V Polsku a ve středovýchodní Evropě je hřib smrkový základní houbovou surovinou, tradičně sušenou a nakládanou. V Itálii, kde je známý jako porcino, tvoří tradiční přísadu dušených a smažených pokrmů. Ve Francii je pod názvem cèpe hojně využíván v regionální gastronomii, zatímco v západoevropských kuchyních jeho obliba vzrostla pod vlivem kulinářských tradic jihu kontinentu.
Stanoviště a výskyt
Hřib smrkový se vyskytuje v mírném a boreálním pásmu severní polokoule a roste v jehličnatých, listnatých i smíšených lesích. Jako ektomykorhizní houba tvoří vazby s mnoha druhy lesních dřevin. Podle taxonomicko-ekologických výzkumů patří k jeho hlavním mykorhizním partnerům jehličnaté stromy včetně smrku (Picea), borovice (Pinus) a jedle (Abies), a listnaté stromy, především dub (Quercus), buk (Fagus), bříza (Betula) a kaštanovník (Castanea).
Druh osidluje rozmanité typy lesních půd, nejčastěji s kyselou reakcí, včetně písčitých, písčitohlinitých a humózních podkladů, nezřídka v podrostu s mechy a borůvčím. Vyskytuje se jak v nížinách, tak v pahorkatinách a horských oblastech.
Rozpětí pozorování plodnic zdokumentovaná v přehledech pro střední Evropu zahrnují v Polsku období od června do listopadu (VI–XI), zatímco v Česku od června do října (VI–X). Tato rozpětí vymezují časový rámec zaznamenávání plodnic v terénu v závislosti na povětrnostních podmínkách, bez bezdůvodného vyzdvihování měsíčních vrcholů či regionálních srovnání četnosti výskytu.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Kulinářské hodnocení
- Velmi chutný
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Obchod
- Povoleno k prodeji
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Vědecké názvy a taxonomie
- Platné vědecké jméno
Boletus edulis Bull.
- Dřívější vědecká jména
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Rozsah taxonu a omezení určování
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Ekologie a rozšíření
Laboratorní diagnostika
Strukturované údaje
Bazidie
Kaulocystidy
Pokožka klobouku
Reakce s činidly
- Amyloidní reakce
- Amyloidní reakce: negativní. [14]
Výtrusy
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: žlutohnědý. [20]
- Kapky uvnitř výtrusu
- Kapky uvnitř výtrusu: přítomný. [21]
- Délka výtrusu
- Délka výtrusu: 16–19 µm. [20]
Délka výtrusu: 12–18 µm. [17]
Délka výtrusu: 12–19,5 µm. [14]
Délka výtrusu: 14–18 µm. [24]
Délka výtrusu: 13–16,5 µm. [21] - Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 2,5–3,9. [14]
Poměr délky a šířky výtrusu: 2,8–3,6. [21]
Poměr délky a šířky výtrusu: 2,7–3,4. [20] - Tvar výtrusu
- Tvar výtrusu: vřetenovitý. [24]
Tvar výtrusu: protáhle elipsoidní. [17]
Tvar výtrusu: vřetenovitý. [17]
Tvar výtrusu: vřetenovitý. [21]
Tvar výtrusu: elipsoidní. [21]
Tvar výtrusu: vřetenovitý. [20] - Povrch výtrusu
- Povrch výtrusu: hladký. [24]
Povrch výtrusu: hladký. [17]
Povrch výtrusu: hladký. [21]
Povrch výtrusu: hladký. [20] - Tloušťka stěny výtrusu
- Tloušťka stěny výtrusu: tlustostěnný. [20]
Materiál a metody výzkumu
- Výsledky zaznamenané v pramenech — Délka koncové buňky pokožky klobouku
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Výsledky zaznamenané v pramenech — Šířka koncové buňky pokožky klobouku
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Výsledky zaznamenané v pramenech — Délka výtrusu
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Výsledky zaznamenané v pramenech — Poměr délky a šířky výtrusu
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Ověření výskytu — rozsah a omezení
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Příprava materiálu pro mikroskopii
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje dořešení.
- Vazby dřívějších zjištění vyžadují opětovnou kontrolu.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Právní základ a rozsah hodnocení
Nejdůležitější látky a jejich účinek
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Stanoviště a výskyt
Stanoviště, oblast a sezóna
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Česko | Oblasti nebyly určeny | VI–X |
|
| Polsko | Dolní Slezsko — rozsah uvedený zdrojem | VI–XI |
|
Zdroje
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis