
Їстівний

Дозволений до обігу
Установіть місцезнаходження, щоб побачити дані для свого регіону.


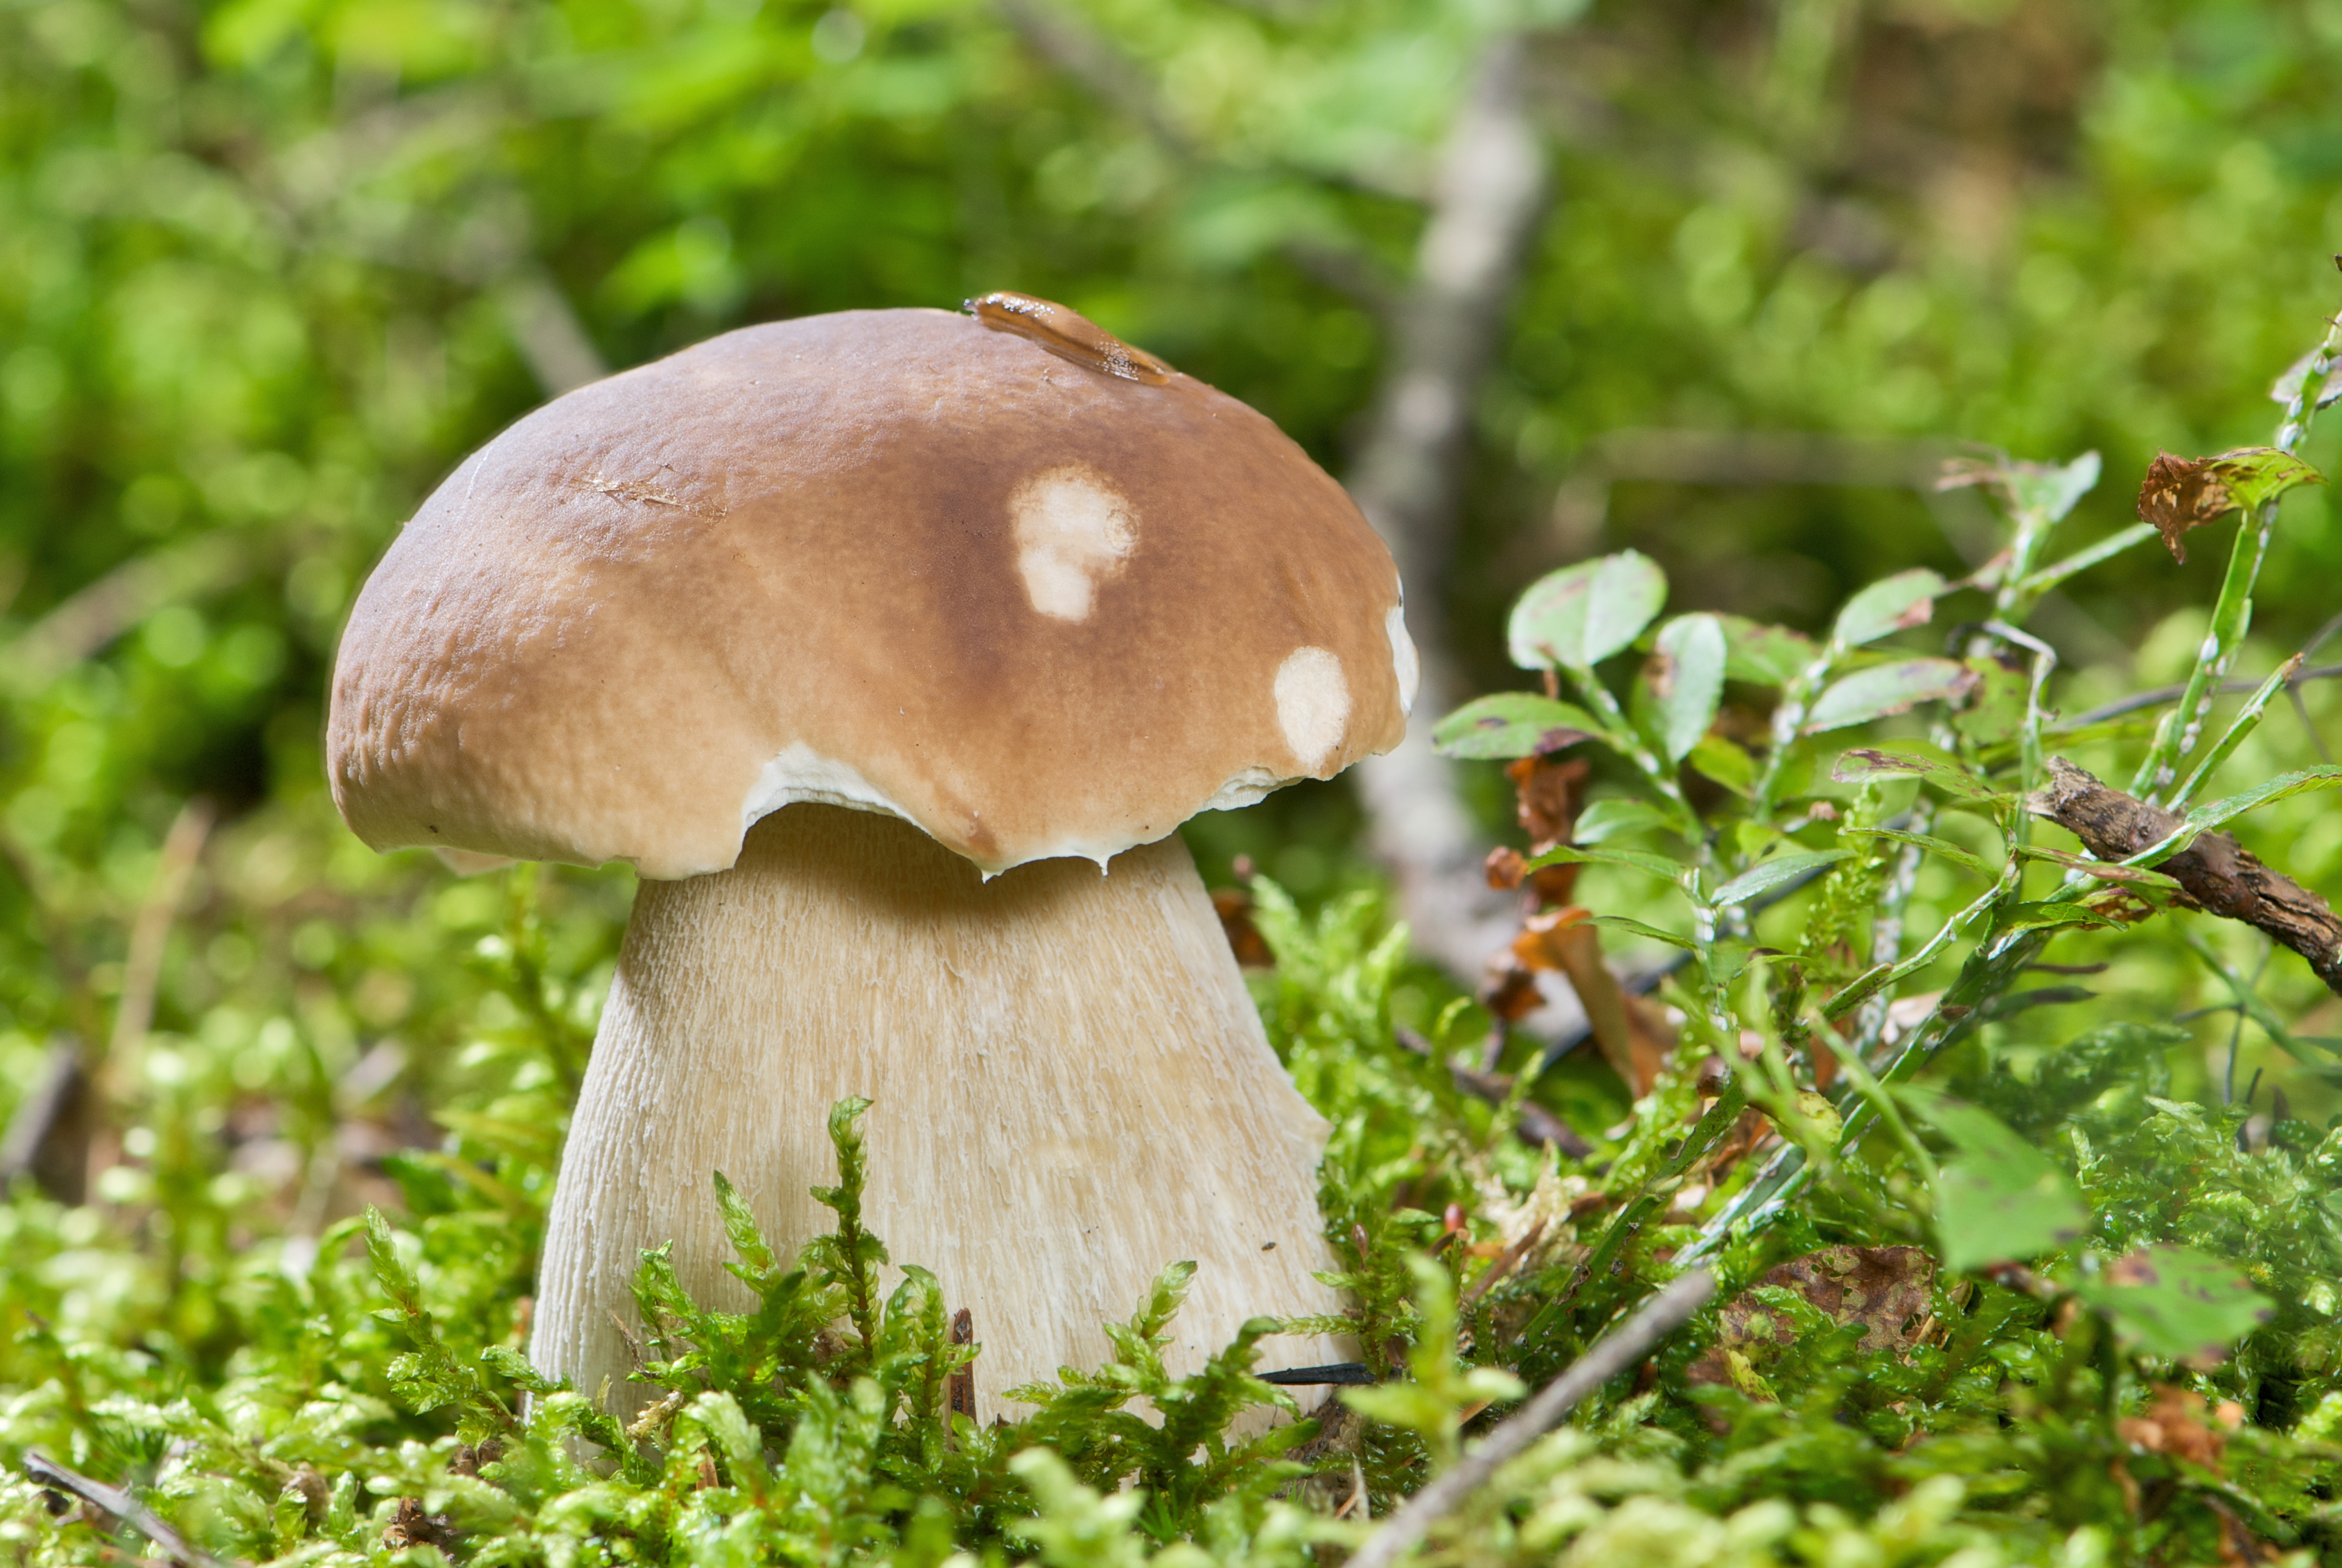


Білий гриб (Boletus edulis) — це цінний їстівний гриб, поширений у хвойних, листяних і мішаних лісах на кислих ґрунтах. Утворює плодові тіла з м'ясистою коричневою шапкою та ніжкою, вкритою дрібною білуватою або світло-коричневою сіточкою. Пори трубочок у молодих грибів білі, а у зрілих змінюють забарвлення на жовте до жовто-оливкового. Білий м'якуш не змінює кольору після розрізання. Цей вид утворює мікоризу з різними деревами, зокрема зі смерікою, ялицею, сосною, буком і березою.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
Шапинка
- Форма шапинки
- у молодих плодових тіл: Форма шапинки: напівкулястий.
у зрілих плодових тіл: Форма шапинки: опуклий.
у зрілих плодових тіл: Форма шапинки: плоский. - Рельєф поверхні шапинки
- Рельєф поверхні шапинки: гладенький.
Рельєф поверхні шапинки: зморшкуватий. - Покрив шапинки
- Покрив шапинки: гола.
- Блиск поверхні шапинки
- у мокрому стані: Блиск поверхні шапинки: блискучий.
- Клейкість і слизистість шапинки
- у мокрому стані: Клейкість і слизистість шапинки: липкий.
у мокрому стані: Клейкість і слизистість шапинки: слизистий. - Колір шапинки
- Колір шапинки: бежевий.
Колір шапинки: коричневий.
Колір шапинки: темно-коричневий.
у зрілих плодових тіл: Колір шапинки: темно-коричневий.
у молодих плодових тіл: Колір шапинки: світло-коричневий.
Колір шапинки: світло-коричневий.
Колір шапинки: світло-вохристий.
Колір шапинки: вохристо-коричневий.
у зрілих плодових тіл: Колір шапинки: червоно-коричневий.
Колір шапинки: білий (на краю шапинки). - Діаметр шапинки
- Діаметр шапинки становить 50–300 mm.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: трубочки.
Трубочки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (трубочки).
- Профіль гіменофора біля ніжки
- Профіль гіменофора біля ніжки: виїмчастий біля ніжки (трубочки).
- Відокремлюваність гіменофора від шапинки
- Відокремлюваність гіменофора від шапинки: легко відділяється (трубочки).
- Форма пор
- у молодих плодових тіл: Форма пор: округлий.
у зрілих плодових тіл: Форма пор: кутасті. - Колір пор після пошкодження
- Колір пор після пошкодження: без зміни кольору.
Колір пор після пошкодження: без зміни кольору. - Колір трубочок після пошкодження
- Колір трубочок після пошкодження: без зміни кольору.
- Природний колір пор
- у молодих плодових тіл: Природний колір пор: білий.
у зрілих плодових тіл: Природний колір пор: жовтий.
у зрілих плодових тіл: Природний колір пор: жовто-оливковий.
у зрілих плодових тіл: Природний колір пор: оливково-зелено-жовта.
у молодих плодових тіл: Природний колір пор: білувате.
у зрілих плодових тіл: Природний колір пор: жовто-зелений. - Природний колір трубочок
- у зрілих плодових тіл: Природний колір трубочок: кремовий.
у зрілих плодових тіл: Природний колір трубочок: блідо-жовтий.
у молодих плодових тіл: Природний колір трубочок: білий.
у зрілих плодових тіл: Природний колір трубочок: жовто-оливковий.
у зрілих плодових тіл: Природний колір трубочок: оливково-зелено-жовта.
у молодих плодових тіл: Природний колір трубочок: білувате.
у зрілих плодових тіл: Природний колір трубочок: жовтий.
у зрілих плодових тіл: Природний колір трубочок: жовто-зелений.
Ніжка та основа
- Форма ніжки
- у молодих плодових тіл: Форма ніжки: бочкоподібний.
у зрілих плодових тіл: Форма ніжки: булавоподібний.
Форма ніжки: циліндричний.
Форма ніжки: булавоподібний.
Форма ніжки: звужується до основи. - Основа ніжки
- Основа ніжки: булавоподібна.
Основа ніжки: потовщена. - Колір ніжки
- Колір ніжки: білувате.
Колір ніжки: світло-коричневий. - Рельєф поверхні ніжки
- у верхній частині ніжки: Рельєф поверхні ніжки: сітчаста.
- Довжина ніжки
- Довжина ніжки: 20–300 mm.
- Діаметр ніжки
- Діаметр ніжки: 15–120 mm.
- Колір сіточки ніжки
- у верхній частині ніжки: Колір сіточки ніжки: білувате.
у верхній частині ніжки: Колір сіточки ніжки: світло-коричневий.
у верхній частині ніжки: Колір сіточки ніжки: білий.
М'якуш
- Колір м’якуша
- Колір м’якуша: білий.
Колір м’якуша: червоно-коричневий (м’якуш шапинки, під шкіркою).
Колір м’якуша: рожевуватий (м’якуш шапинки, під шкіркою).
Колір м’якуша: коричнюватий (м’якуш біля основи ніжки). - Щільність м’якуша
- у молодих плодових тіл: Щільність м’якуша: щільний.
у зрілих плодових тіл: Щільність м’якуша: м’який. - Смак м’якуша
- Смак м’якуша: слабкий.
- Пружність м’якуша
- у молодих плодових тіл: Пружність м’якуша: пружний.
- Структура м’якуша
- у зрілих плодових тіл: Структура м’якуша: ватоподібний.
у старих плодових тіл: Структура м’якуша: губчастий. - Колір м’якуша після пошкодження
- Колір м’якуша після пошкодження: без зміни кольору.
Колір м’якуша після пошкодження: без зміни кольору.
Колір м’якуша після пошкодження: без зміни кольору. - Запах м’якуша
- Запах м’якуша: грибний, слабкий.
Запах м’якуша: слабкий. - Відтінок смаку м’якуша
- Відтінок смаку м’якуша: горіховий.
Де і коли росте
- Оселище
- Оселище: хвойний ліс.
Оселище: листяний ліс.
Оселище: мішаний ліс. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці.
Характер росту плодових тіл: групами. - Частота трапляння
- Частота трапляння: звичайний.
- Період плодоношення
- Плодові тіла з’являються з червня до листопада.
- Територія поширення
Їстівність і кулінарія
- Їстівність
- Їстівний
- Кулінарна оцінка
- Дуже смачний
Право
Правила для місцезнаходження: Польща
- Охорона
- У Польщі Boletus edulis не підлягає законодавчій видовій охороні.
- Торгівля
- Дозволений до обігу
З чим можна сплутати
Tylopilus felleus
Основні відмінності
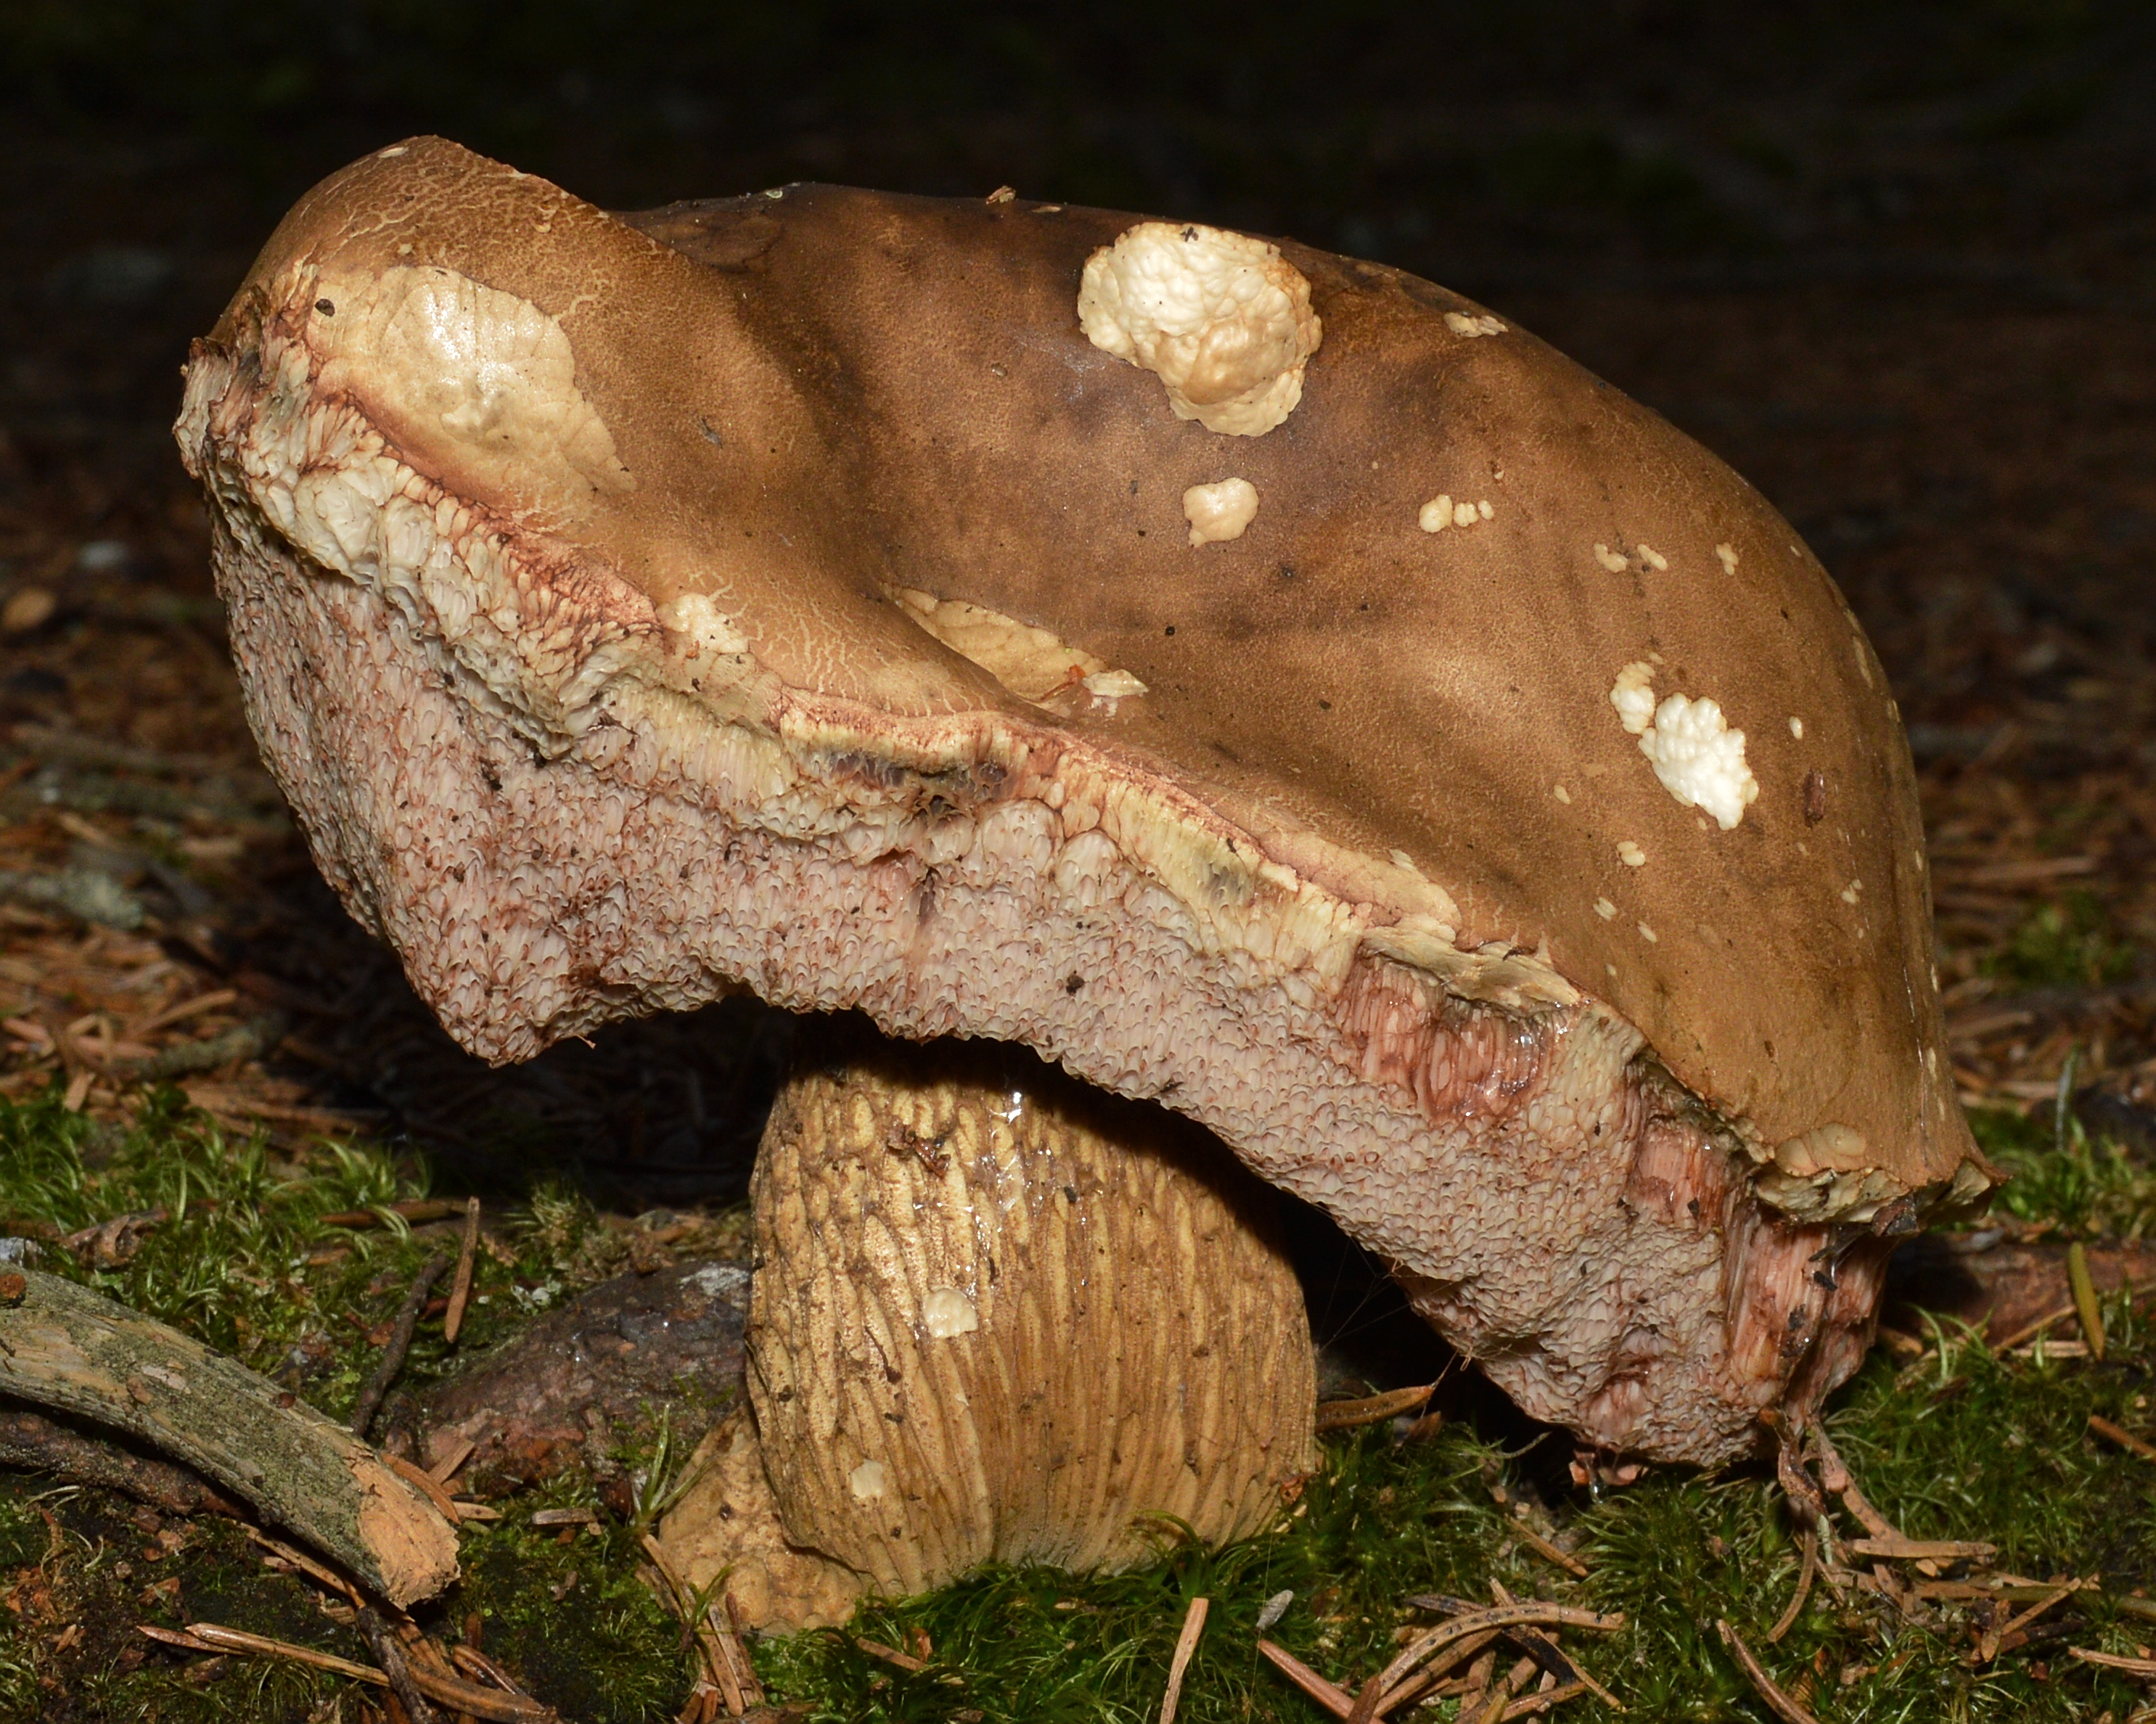
Гірчак жовчний (Tylopilus felleus) у молодих екземплярів має білуваті пори, через що його часом плутають із білим грибом. У міру дозрівання його пори стають брудно-рожевими, сіточка на ніжці товста, темна й опукла, а шапинка залишається матовою та оксамитовою. М'якуш гірчака вирізняється інтенсивною гіркотою, яку не усуває ні варіння, ні сушіння, через що навіть одне плодове тіло псує смак усієї страви.
Білий гриб (Boletus edulis) нагадує молодий гірчак за статурою та коричневою шапинкою. Проте він відрізняється світлішою, спочатку білою ніжкою, вкритою делікатною, світлою сіточкою (помітною переважно у верхній її частині). Крім того, трубочки й пори білого гриба з віком змінюють колір із білого на жовто-зелений та оливково-зелений, тоді як у гірчака вони рожевіють.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Джерело фото · Public domainBoletus reticulatus
Основні відмінності
Боровик сітчастий (Boletus reticulatus) вирізняється шапинкою з матовою, замшевою або довго інеїстою поверхнею, яка під час посухи часто розтріскується на дрібні ділянки, а також виразною сіточкою, що часто вкриває майже всю ніжку. Трапляється переважно під буками та дубами, з'являючись у сезоні зазвичай раніше, ніж боровик шляхетний. З огляду на мінливість ознак поверхні та поширення сіточки в обох видів, саме лише охоплення комірок на ніжці не завжди дає змогу однозначно їх розрізнити.
Боровик шляхетний (Boletus edulis) зазвичай має гладшу поверхню шапинки, яка у вологу погоду стає клейкою та слизистою, а на її краю часто помітна вузька, світліша облямівка. Сіточка на ніжці боровика шляхетного загалом ніжніша й обмежена переважно її верхньою частиною. У боровика сітчастого шапинка зазвичай суха, замшева й схильна до розтріскування, а сіточка на ніжці світліша та виразніша, хоча сама розлогість сітки не є надійним вирішальним критерієм.
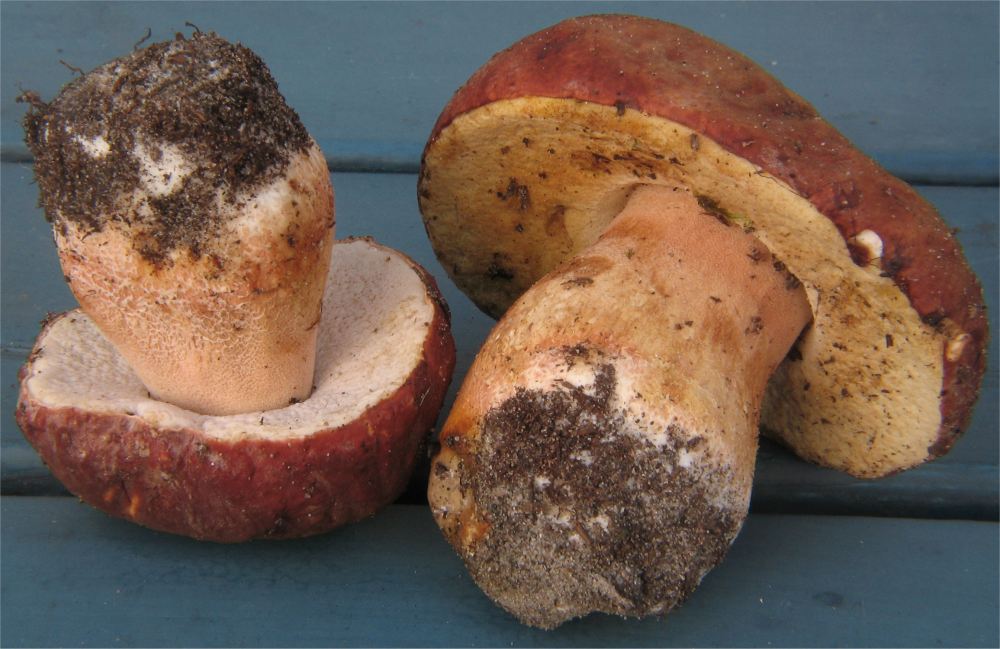
Boletus pinophilus
Основні відмінності
Боровик сосновий (Boletus pinophilus) характеризується темною, червоно-коричневою або майже чорно-коричневою шапинкою і росте переважно у зв'язку із соснами. У мікроскопічній будові він вирізняється товстою, желатинізованою шкіркою та кінцевими елементами завширшки до 27 µm, що містять червоно-коричневий пристінковий інкрустуючий пігмент, який розчиняється гідроксидом калію (KOH).
Боровик шляхетний (Boletus edulis) буває із шапинкою у відтінках від світло-коричневого до темно-коричневого, іноді з жовтуватим або червонуватим тоном, проте його поверхня гола, масляниста, а сіточка на ніжці зазвичай дрібна й обмежена верхньою частиною. Мікроскопічно кінцеві елементи шкірки B. edulis мають 4–19 µm завширшки, а пігмент міститься всередині клітин. Наявність червонуватого відтінку та сусідство сосен не є винятковими ознаками для B. pinophilus, оскільки B. edulis також росте у соснових борах на бідних, кислих пісках.
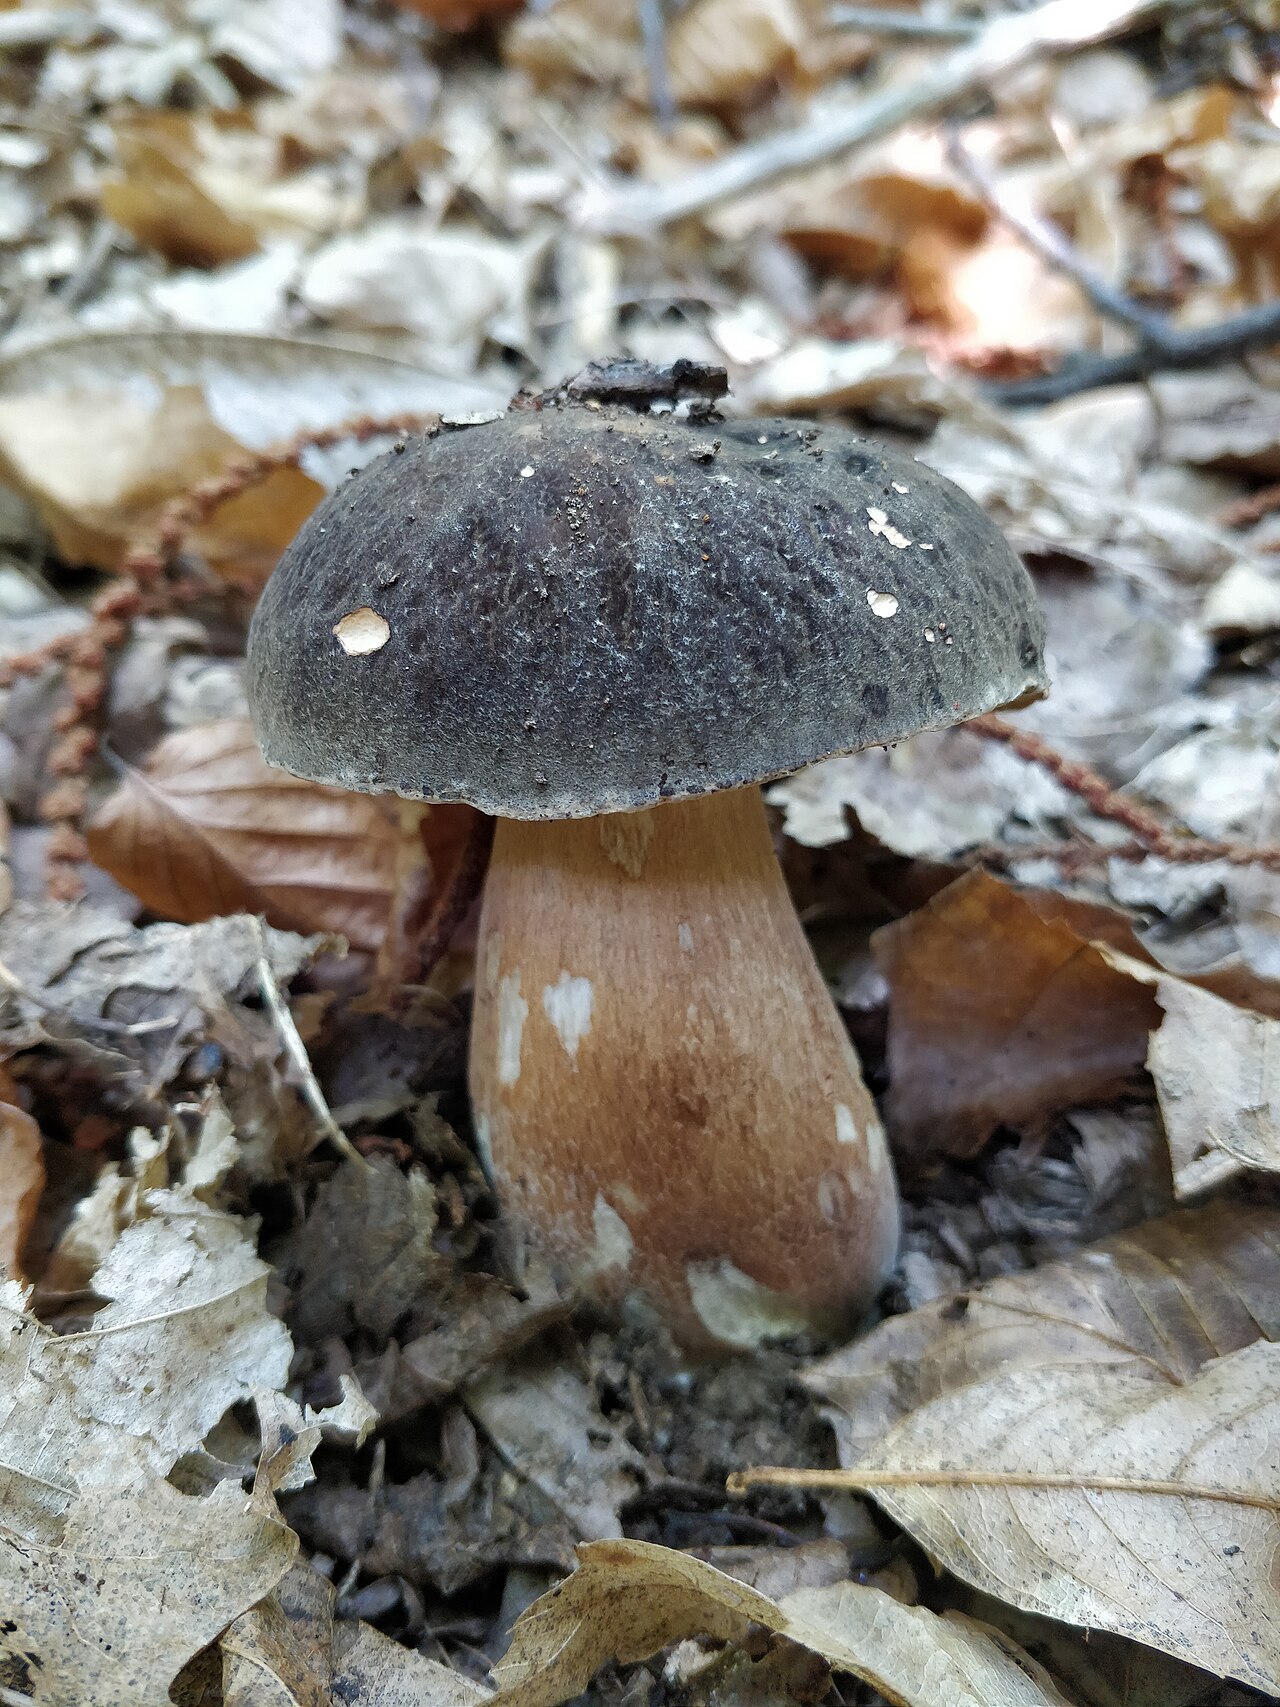
Boletus aereus
Основні відмінності
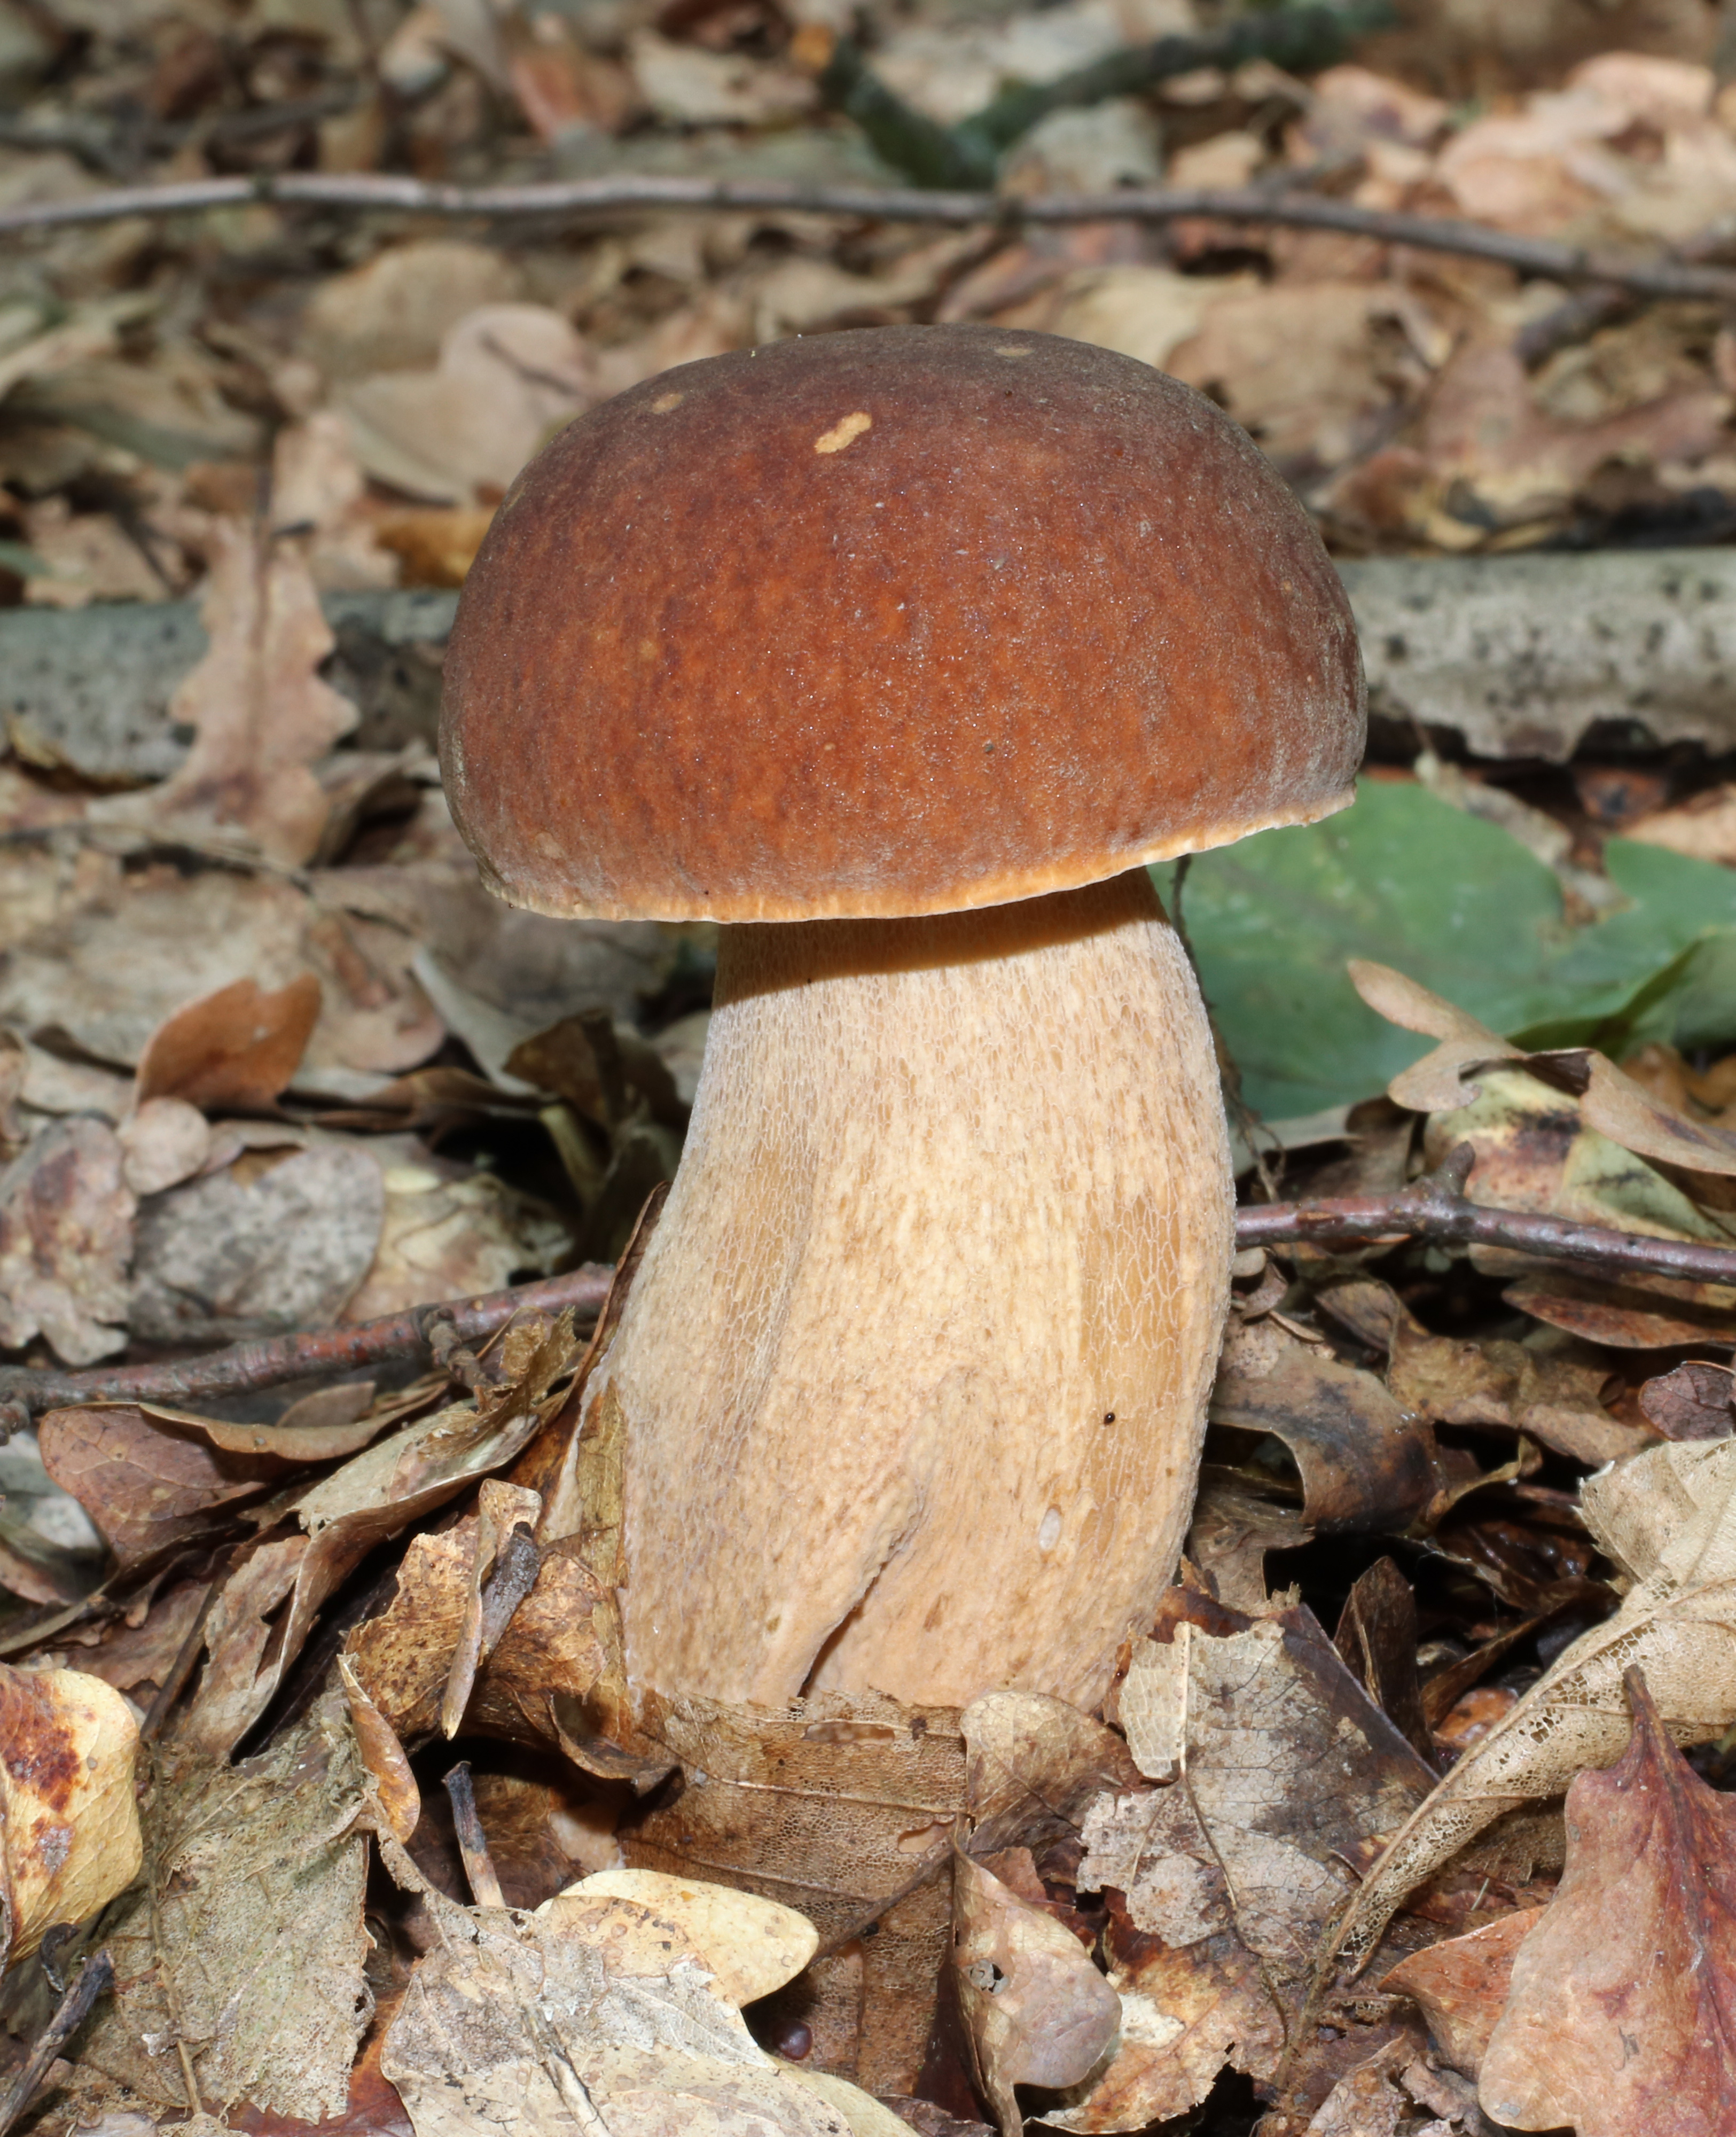
Білий гриб (Boletus edulis) відрізняється гладкою, у вологих умовах маслянистою на дотик шкіркою шапки, ширшою палітрою світліших і темніших відтінків коричневого кольору та білуватою сіточкою, наявною зазвичай у верхній половині ніжки (рідше спускається нижче). Мікроскопічно кінцеві елементи шкірки шапки у B. edulis мають ширину 4–19 µm, тоді як у B. aereus шапка суха, дрібноповстиста й дуже темна, хоча окремі ознаки забарвлення можуть накладатися одна на одну.
Боровик бронзовий (Boletus aereus) трапляється в теплих листяних лісах, переважно дубових, також на вапнякових ґрунтах, рідше під каштанами їстівними. Має дуже темну, суху, делікатно оксамитову шапку. Під мікроскопом кінцеві елементи її шкірки досягають ширини до 11 µm і містять дрібнозернистий внутрішньоклітинний пігмент.
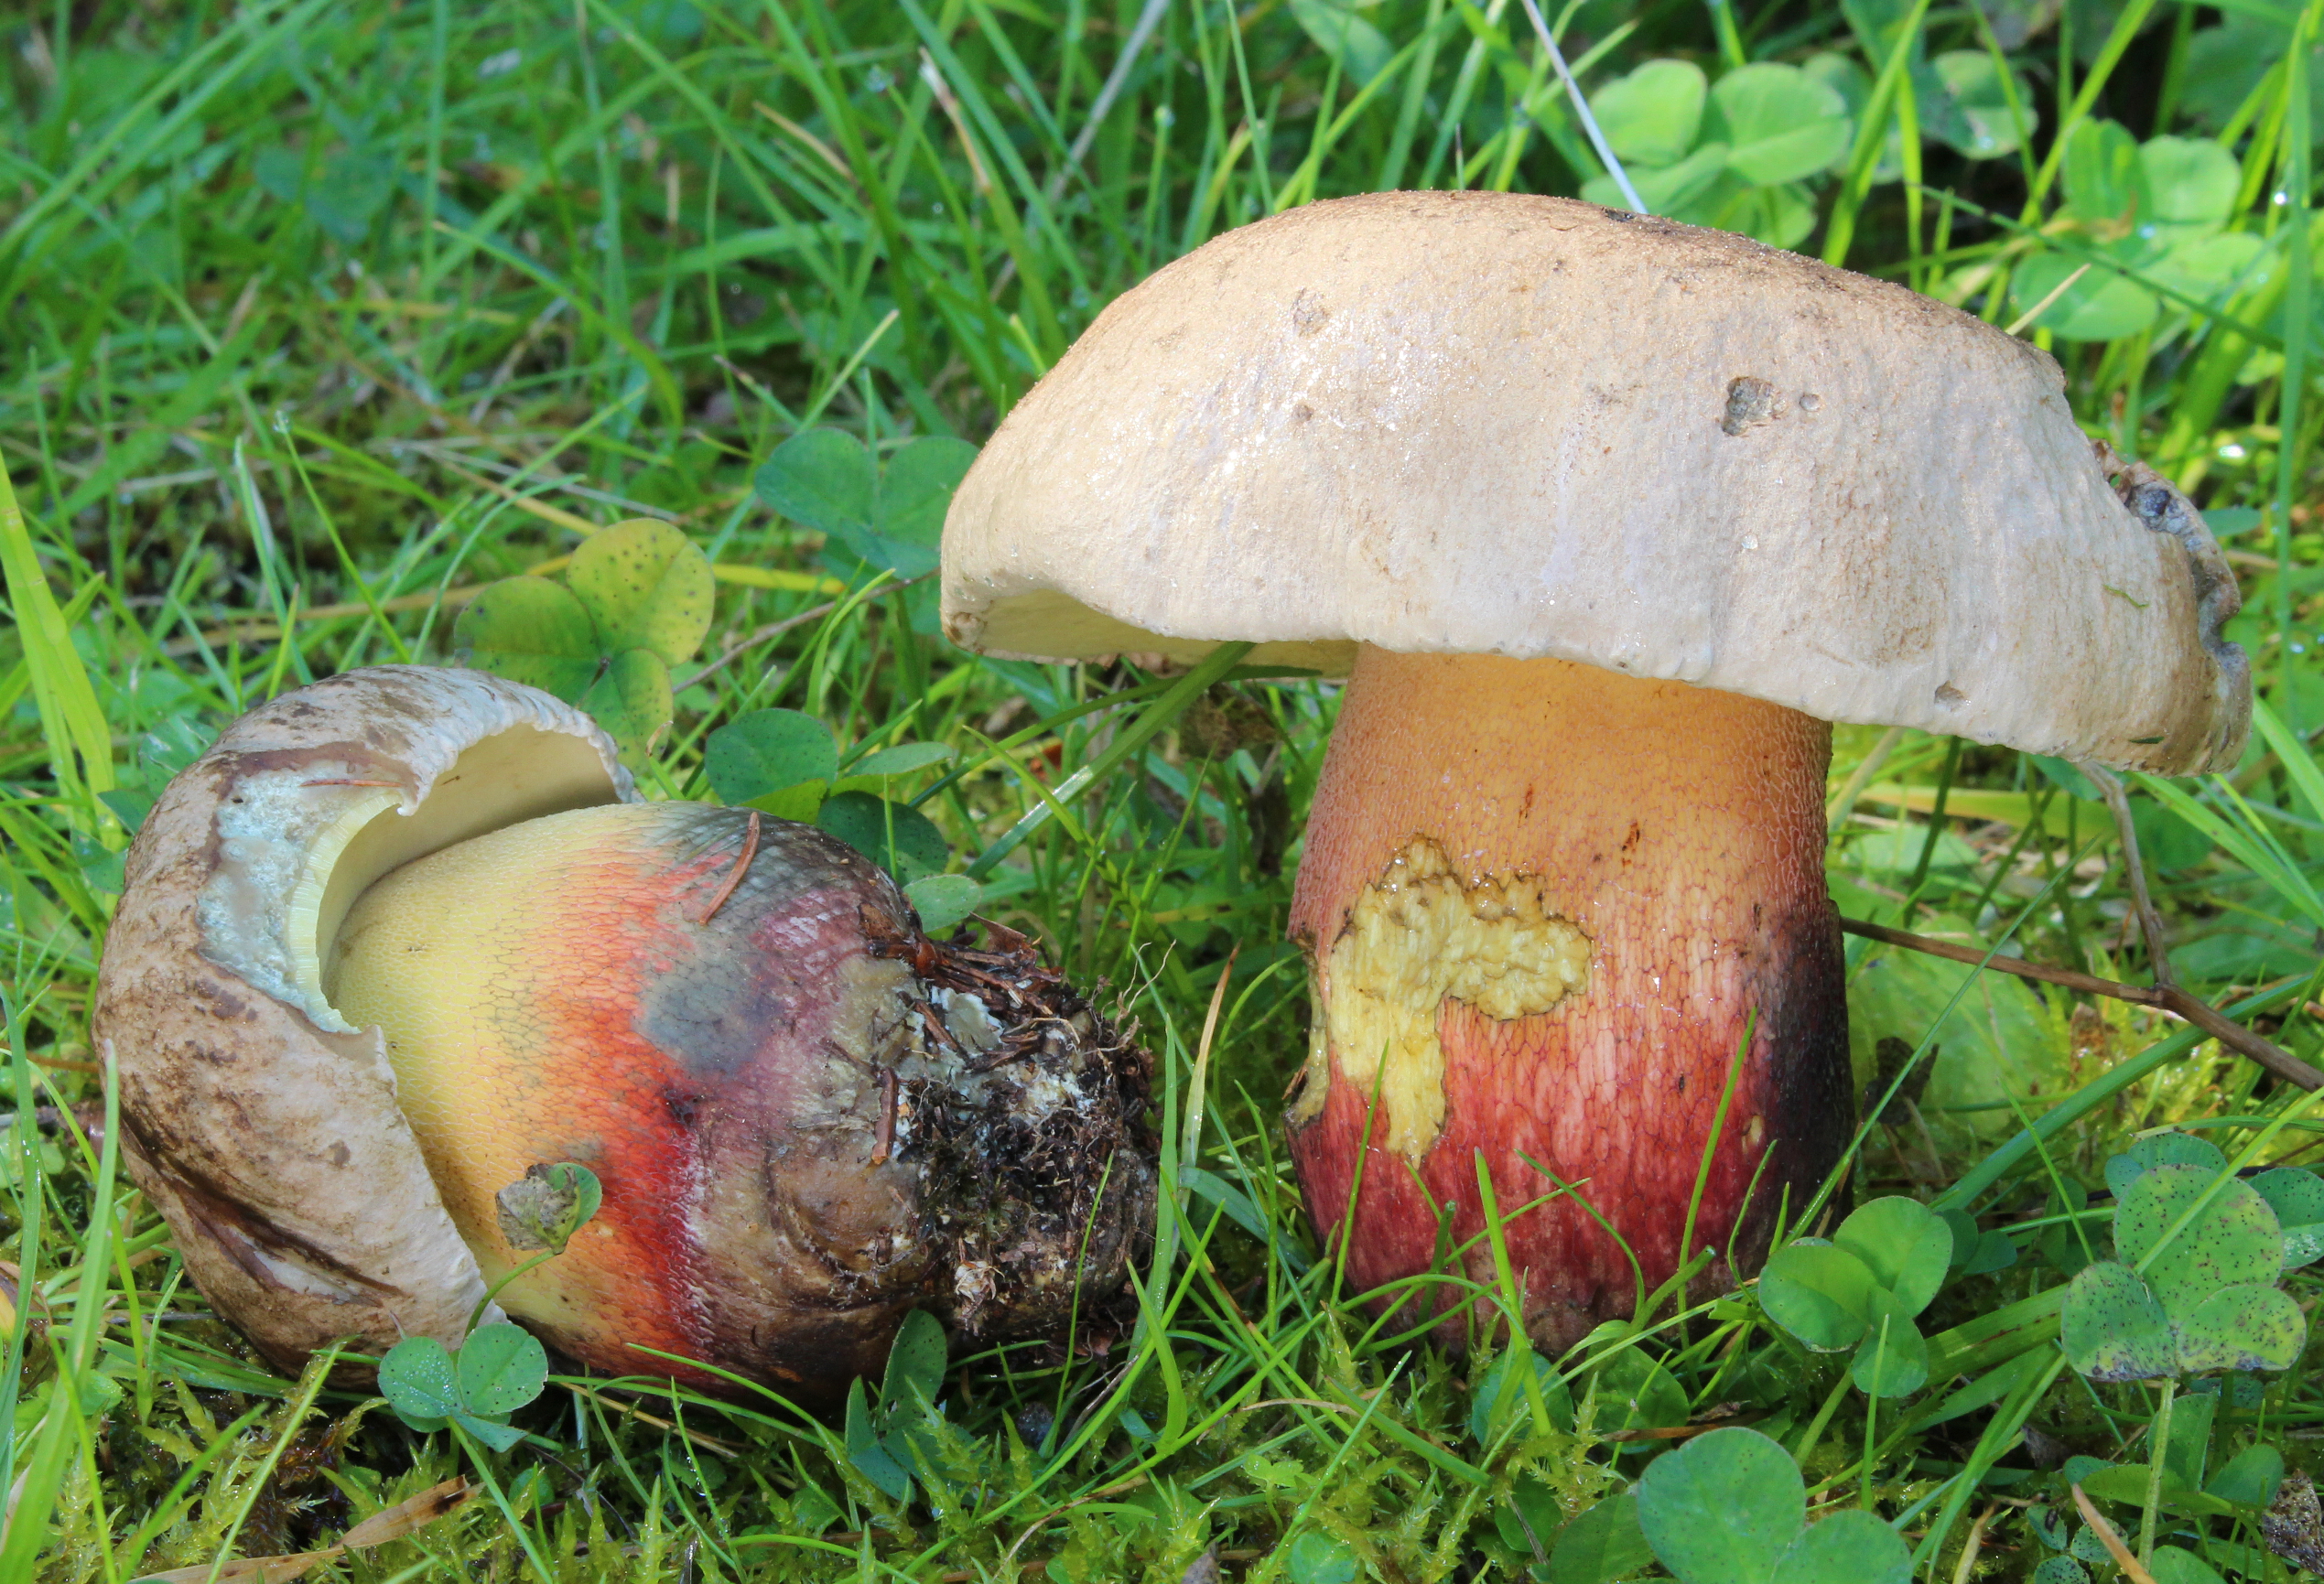
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Джерело фото · CC BY 3.0Caloboletus calopus
Основні відмінності
Помилка з білим грибом (Boletus edulis) у польових умовах можлива головним чином при побіжному погляді зверху на молоді плодові тіла. Білий гриб відрізняється коричневою шапинкою, трубочками від білих до жовто-зелених, які не синіють при натисканні, а також світлою ніжкою без сліду яскравого червоного кольору та м'яким, приємним смаком.
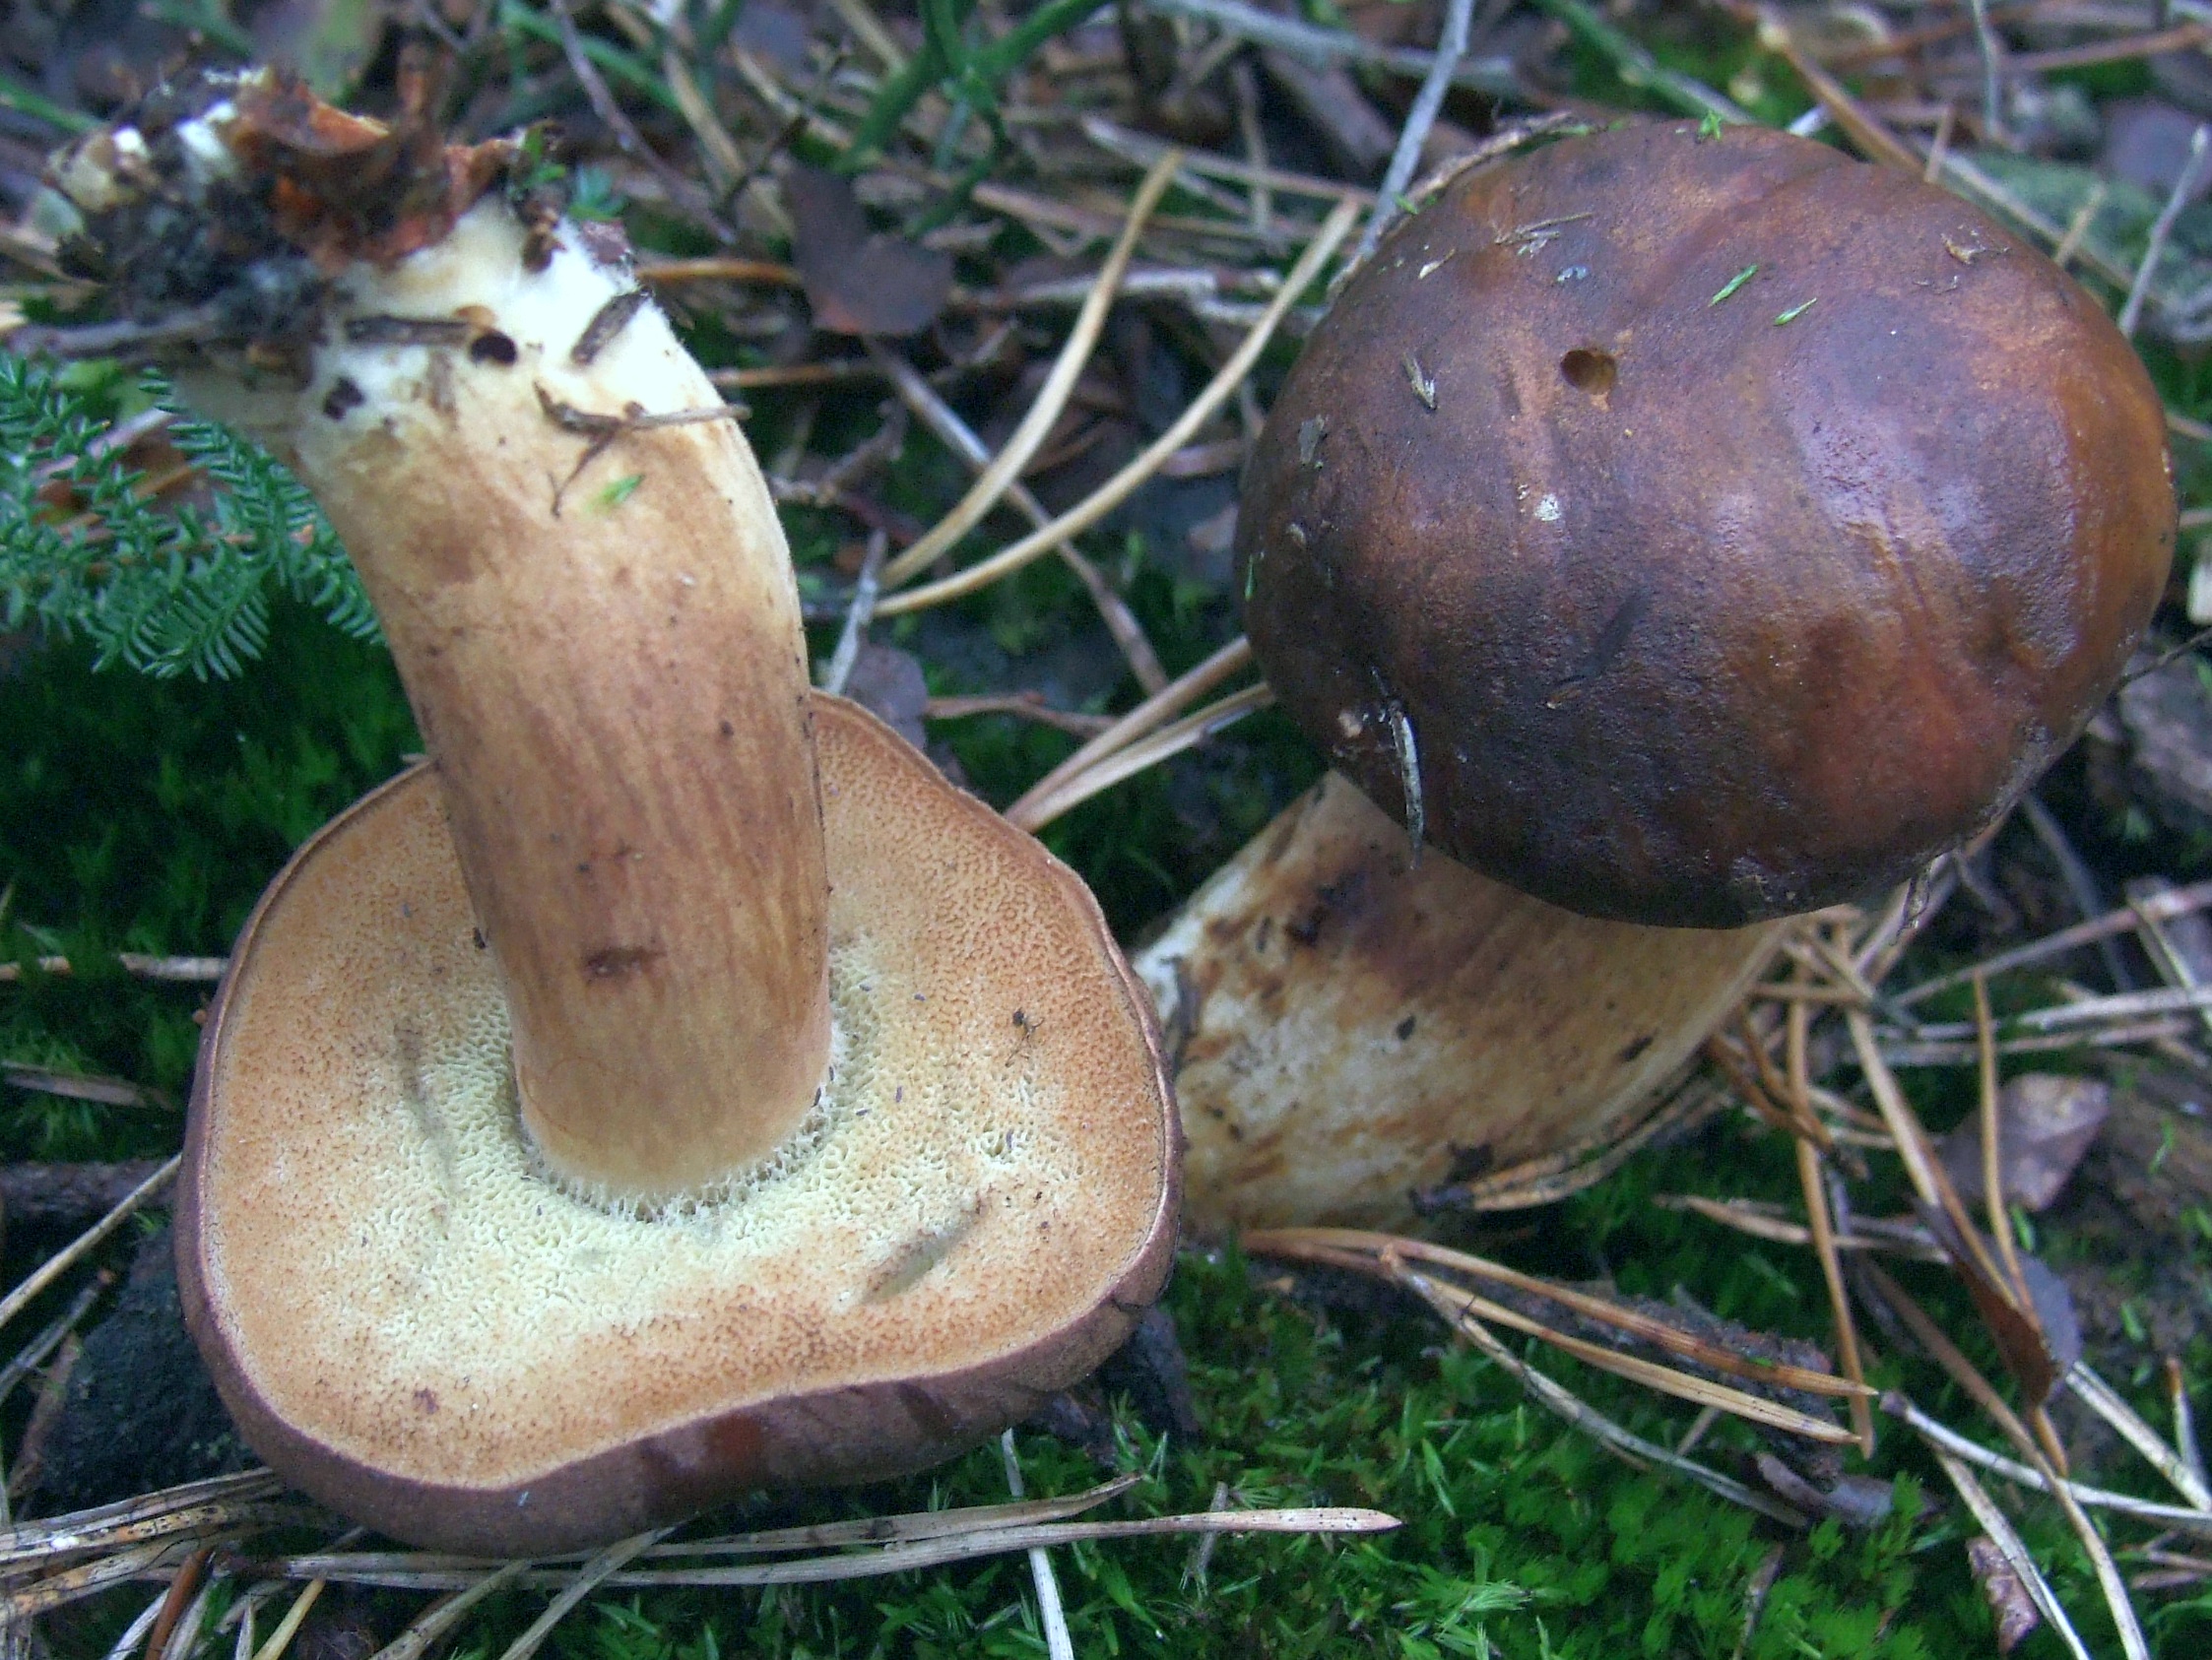
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Джерело фото · CC BY-SA 4.0Imleria badia
Основні відмінності
Польський гриб (Imleria badia) і боровик шляхетний (Boletus edulis) — це популярні їстівні гриби. Боровик шляхетний має ніжку зі світлою сіточкою та пори, які спочатку білі, а з віком стають від жовтих до жовто-оливкових і під натиском не змінюють забарвлення. Його м'якуш після розрізання залишається білим. Польський гриб має коричнювату ніжку, позбавлену сіточки, а пори під тиском виразно синіють. М'якуш польського гриба після розрізання синіє, особливо в шапинці та над трубочками.
FAQ
Чи синіє білий гриб на розрізі?
Ні. М'якуш білого гриба не змінює кольору на розрізі — не синіє і не темніє при контакті з повітрям. Відсутність зміни забарвлення на зрізі є важливою діагностичною ознакою.
Чи може шапка білого гриба бути слизькою?
Так. Під час вологої погоди шапка буває слизькою, липкою або слизистою та блискучою, а в молодих плодових тіл — злегка липкою. Сама поверхня шапки буває гладкою або зморшкуватою.
Чи кожен білий гриб має темно-коричневу шапку?
Ні. Колір шапки буває мінливим: від світло-коричневого через горіховий до темно-коричневого та червоно-коричневого. У широкому розумінні виду враховуються також форми зі ще світлішим забарвленням.
Чи правдивик і білий гриб — це одне й те саме?
Правдивик — це народна назва білого гриба, проте в широкому вжитку її часом відносять також до кількох схожих видів боровиків, які збирають грибники.
Чому білий гриб має то білі, то жовто-оливкові пори?
Це залежить від зрілості плодового тіла. У молодих грибів пори білі, натомість у зрілих стають від жовтих до жовто-оливкових. З віком дрібні, округлі пори стають до того ж кутастими.
Чи сушіння підсилює запах боровика?
Так. Свіжі плодові тіла мають слабкий грибний запах, натомість сушіння виразно підсилює аромат. Висушений боровик пахне значно сильніше і є традиційним інгредієнтом польських супів та вареників.
Наскільки великою може бути шапинка боровика шляхетного?
У польських джерелах Сноварський наводить діаметр 60–250 мм, а чеський Тейкал — 50–250 мм. Зі свого боку, праці Муньйоса та Корхонена фіксують для боровика шляхетного шапинки, що досягають до 300 мм (30 см).
Як відрізнити боровика шляхетного від гірчака жовчного?
Гірчак жовчний має темну, товсту сіточку на ніжці та зрілі пори рожевого відтінку. У боровика сіточка дрібна, білувата або світло-коричнева, а зрілі пори — від жовтих до жовто-оливкових.
Коли можна знайти боровика шляхетного?
Це залежить від регіонального підходу. У польських джерелах період появи визначають як літо й осінь, натомість у Чехії гриб плодоносить у регулярному проміжку від червня до жовтня.
Під якими деревами росте боровик шляхетний?
Боровик шляхетний росте у хвойних, листяних і мішаних лісах. Він утворює мікоризні зв'язки з різними деревами: джерела згадують тут ялину, ялицю, сосну, бук і березу.
Любитель
Низ шапинки
- Довжина трубочок
- Довжина трубочок: 5–30 mm.
Назви та історія
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: коричневий. Колір спорового відбитка: зелений.
- Відтінок спорового відбитка
- Відтінок спорового відбитка: темно-оливково-коричневий. Відтінок спорового відбитка: коричнево-оливковий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: веретеноподібний. Форма спори: видовжено-еліпсоїдний. Форма спори: веретеноподібний. Форма спори: веретеноподібний. Форма спори: еліпсоїдний.
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 12–19,5 µm, ширина 4–7 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
- Вапнистість ґрунту
- Вапнистість ґрунту: невапниста.
- Мікоризні партнери
- Загальний зв’язок виду: Мікоризні партнери: Picea (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Abies (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Pinus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Fagus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Betula (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Picea abies (загальний перелік партнерів).
Некулінарне застосування
Щодо позакулінарного застосування білого гриба наукові джерела (зокрема, публікація в IMA Fungus, doi:10.1186/s43008-024-00156-7) фіксують нечисленні локальні етномікологічні свідчення. У польових дослідженнях традиційних знань про гриби задокументовано переказ про народну практику місцевого застосування плодових тіл цього виду при захворюваннях шкіри.
Цей запис є виключно описом наявного етномікологічного свідчення та елементом місцевого травницького фольклору, без наукового підтвердження біологічної ефективності чи лікувальної дії. Сучасна мікологічна та етнобіологічна література розглядає цю згадку лише як свідчення давніх звичаїв, без формування будь-яких терапевтичних або медичних рекомендацій чи рецептур застосування. Будь-яке позакулінарне використання білого гриба мало маргінальний та історичний характер порівняно з його повсюдним харчовим призначенням.
Історія та культура
Білий гриб посідає фундаментальне місце в європейській культурі та лісових традиціях, загально визнаючись найпрестижнішим грибом у збирацьких звичаях. В історії наукової мікології ключовим моментом був формальний опис і присвоєння видової назви Boletus edulis французьким натуралістом Жаном Батистом Бюльяром у 1782 році.
У польській літературній традиції мотив білого гриба увіковічений у III книзі епопеї «Пан Тадеуш» Адама Міцкевича («Залицяння»), де в описі грибозбору з'являється згадка про білий гриб, названий у пісні «полковником грибів». Цю згадку, однак, не слід безпосередньо ототожнювати із сучасним суворим таксономічним трактуванням виду, а скоріше з давнім культурним сприйняттям цінних лісових грибів.
Значення цього гриба у народній культурі Центрально-Східної Європи підтверджують сучасні етнобіологічні дослідження, зокрема аналізи традицій, проведені на українсько-румунському прикордонні. Вони вказують на виняткову стійкість знань про білий гриб у колективній пам'яті місцевих громад. Цей гриб також має сильну святкову та обрядову символіку, будучи традиційним елементом різдвяної вечері як символ зв'язку з природою.
Їстівність і безпека
Білий гриб є високоцінованим їстівним грибом із м'яким горіховим смаком і виразним лісовим ароматом, який посилюється під час сушіння. Для кулінарного споживання збирають здорові, свіжі плодові тіла. Вживання старих, перестиглих або уражених пліснявою плодових тіл може призвести до неспецифічних отруєнь, викликаних процесами розпаду тканин. Стандартною практикою підготовки до споживання є термічна обробка гриба (варіння, тушкування, смаження), тоді як сушіння є методом його консервації.
Традиції споживання демонструють регіональні відмінності. У Польщі та в Центрально-Східній Європі білий гриб є основною грибною сировиною, яку традиційно сушать і маринують. В Італії, де він відомий як porcino, він є традиційним інгредієнтом тушкованих і смажених страв. У Франції під назвою cèpe він широко використовується в регіональній гастрономії, тоді як у західноєвропейських кухнях його популярність зросла під впливом кулінарних традицій півдня континенту.
Оселище та зростання
Білий гриб трапляється в помірній і бореальній зонах північної півкулі, зростаючи в хвойних, листяних та мішаних лісах. Як ектомікоризний гриб, він утворює симбіотичні зв'язки з багатьма видами лісових дерев. Згідно з таксономічно-екологічними дослідженнями, до його основних мікоризних партнерів належать хвойні дерева, зокрема ялина (Picea), сосна (Pinus) і ялиця (Abies), а також листяні дерева, насамперед дуб (Quercus), бук (Fagus), береза (Betula) і каштан (Castanea).
Вид заселяє різноманітні типи лісових ґрунтів, найчастіше кислі, зокрема піщані, піщано-глинисті та гумусні субстрати, нерідко в живому надґрунтовому покриві з мохами та чорницею. Зустрічається як на низовинах, так і в горбистих та гірських районах.
Задокументовані у зведеннях діапазони спостережень плодових тіл у Центральній Європі охоплюють у Польщі період із червня по листопад (VI–XI), а в Чехії — з червня по жовтень (VI–X). Ці діапазони визначають часові межі фіксації плодових тіл у польових умовах залежно від погодних умов, без безпідставного виокремлення місячних піків або регіональних порівнянь частоти трапляння.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Кулінарна оцінка
- Дуже смачний
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Торгівля
- Дозволений для торгівлі
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Наукові назви та таксономія
- Чинна наукова назва
Boletus edulis Bull.
- Колишні наукові назви
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Межі таксона та обмеження визначення
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Екологія та поширення
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
Каулоцистиди
Шкірка шапинки
Реакції з реактивами
- Амілоїдна реакція
- Амілоїдна реакція: негативний. [14]
Спори
- Колір спор під мікроскопом
- Колір спор під мікроскопом: жовто-коричневою. [20]
- Краплі всередині спори
- Краплі всередині спори: наявний. [21]
- Довжина спори
- Довжина спори: 16–19 µm. [20]
Довжина спори: 12–18 µm. [17]
Довжина спори: 12–19,5 µm. [14]
Довжина спори: 14–18 µm. [24]
Довжина спори: 13–16,5 µm. [21] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 2,5–3,9. [14]
Відношення довжини спори до її ширини: 2,8–3,6. [21]
Відношення довжини спори до її ширини: 2,7–3,4. [20] - Форма спори
- Форма спори: веретеноподібний. [24]
Форма спори: видовжено-еліпсоїдний. [17]
Форма спори: веретеноподібний. [17]
Форма спори: веретеноподібний. [21]
Форма спори: еліпсоїдний. [21]
Форма спори: веретеноподібний. [20] - Поверхня спори
- Поверхня спори: гладенький. [24]
Поверхня спори: гладенький. [17]
Поверхня спори: гладенький. [21]
Поверхня спори: гладенький. [20] - Товщина стінки спори
- Товщина стінки спори: товстостінний. [20]
Матеріал і методи досліджень
- Результати, наведені в джерелах — Довжина кінцевої клітини шкірки шапинки
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Результати, наведені в джерелах — Ширина кінцевої клітини шкірки шапинки
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Результати, наведені в джерелах — Довжина спори
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Результати, наведені в джерелах — Відношення довжини спори до її ширини
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Результати, наведені в джерелах — Ширина спори
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Перевірка поширення — обсяг і обмеження
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Підготовка матеріалу для мікроскопії
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Обсяг опрацювання
Перед завершенням запис потребує доповнення або перевірки.
- Пошук регіонів поширення потребує розрахунку.
- Зв'язки попередніх висновків потребують повторної перевірки.
- Нові джерела вимагають обліку інформації, виявленої під час огляду.
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Найважливіші речовини та їхня дія
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Оселище та зростання
Оселище, регіон і сезон
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Джерела |
|---|---|---|---|
| Чехія | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Польща | Нижня Сілезія — діапазон, названий джерелом | VI–XI |
|
Джерела
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis