
Съедобный

Допущен к продаже
Укажите местоположение, чтобы увидеть данные для своего региона.


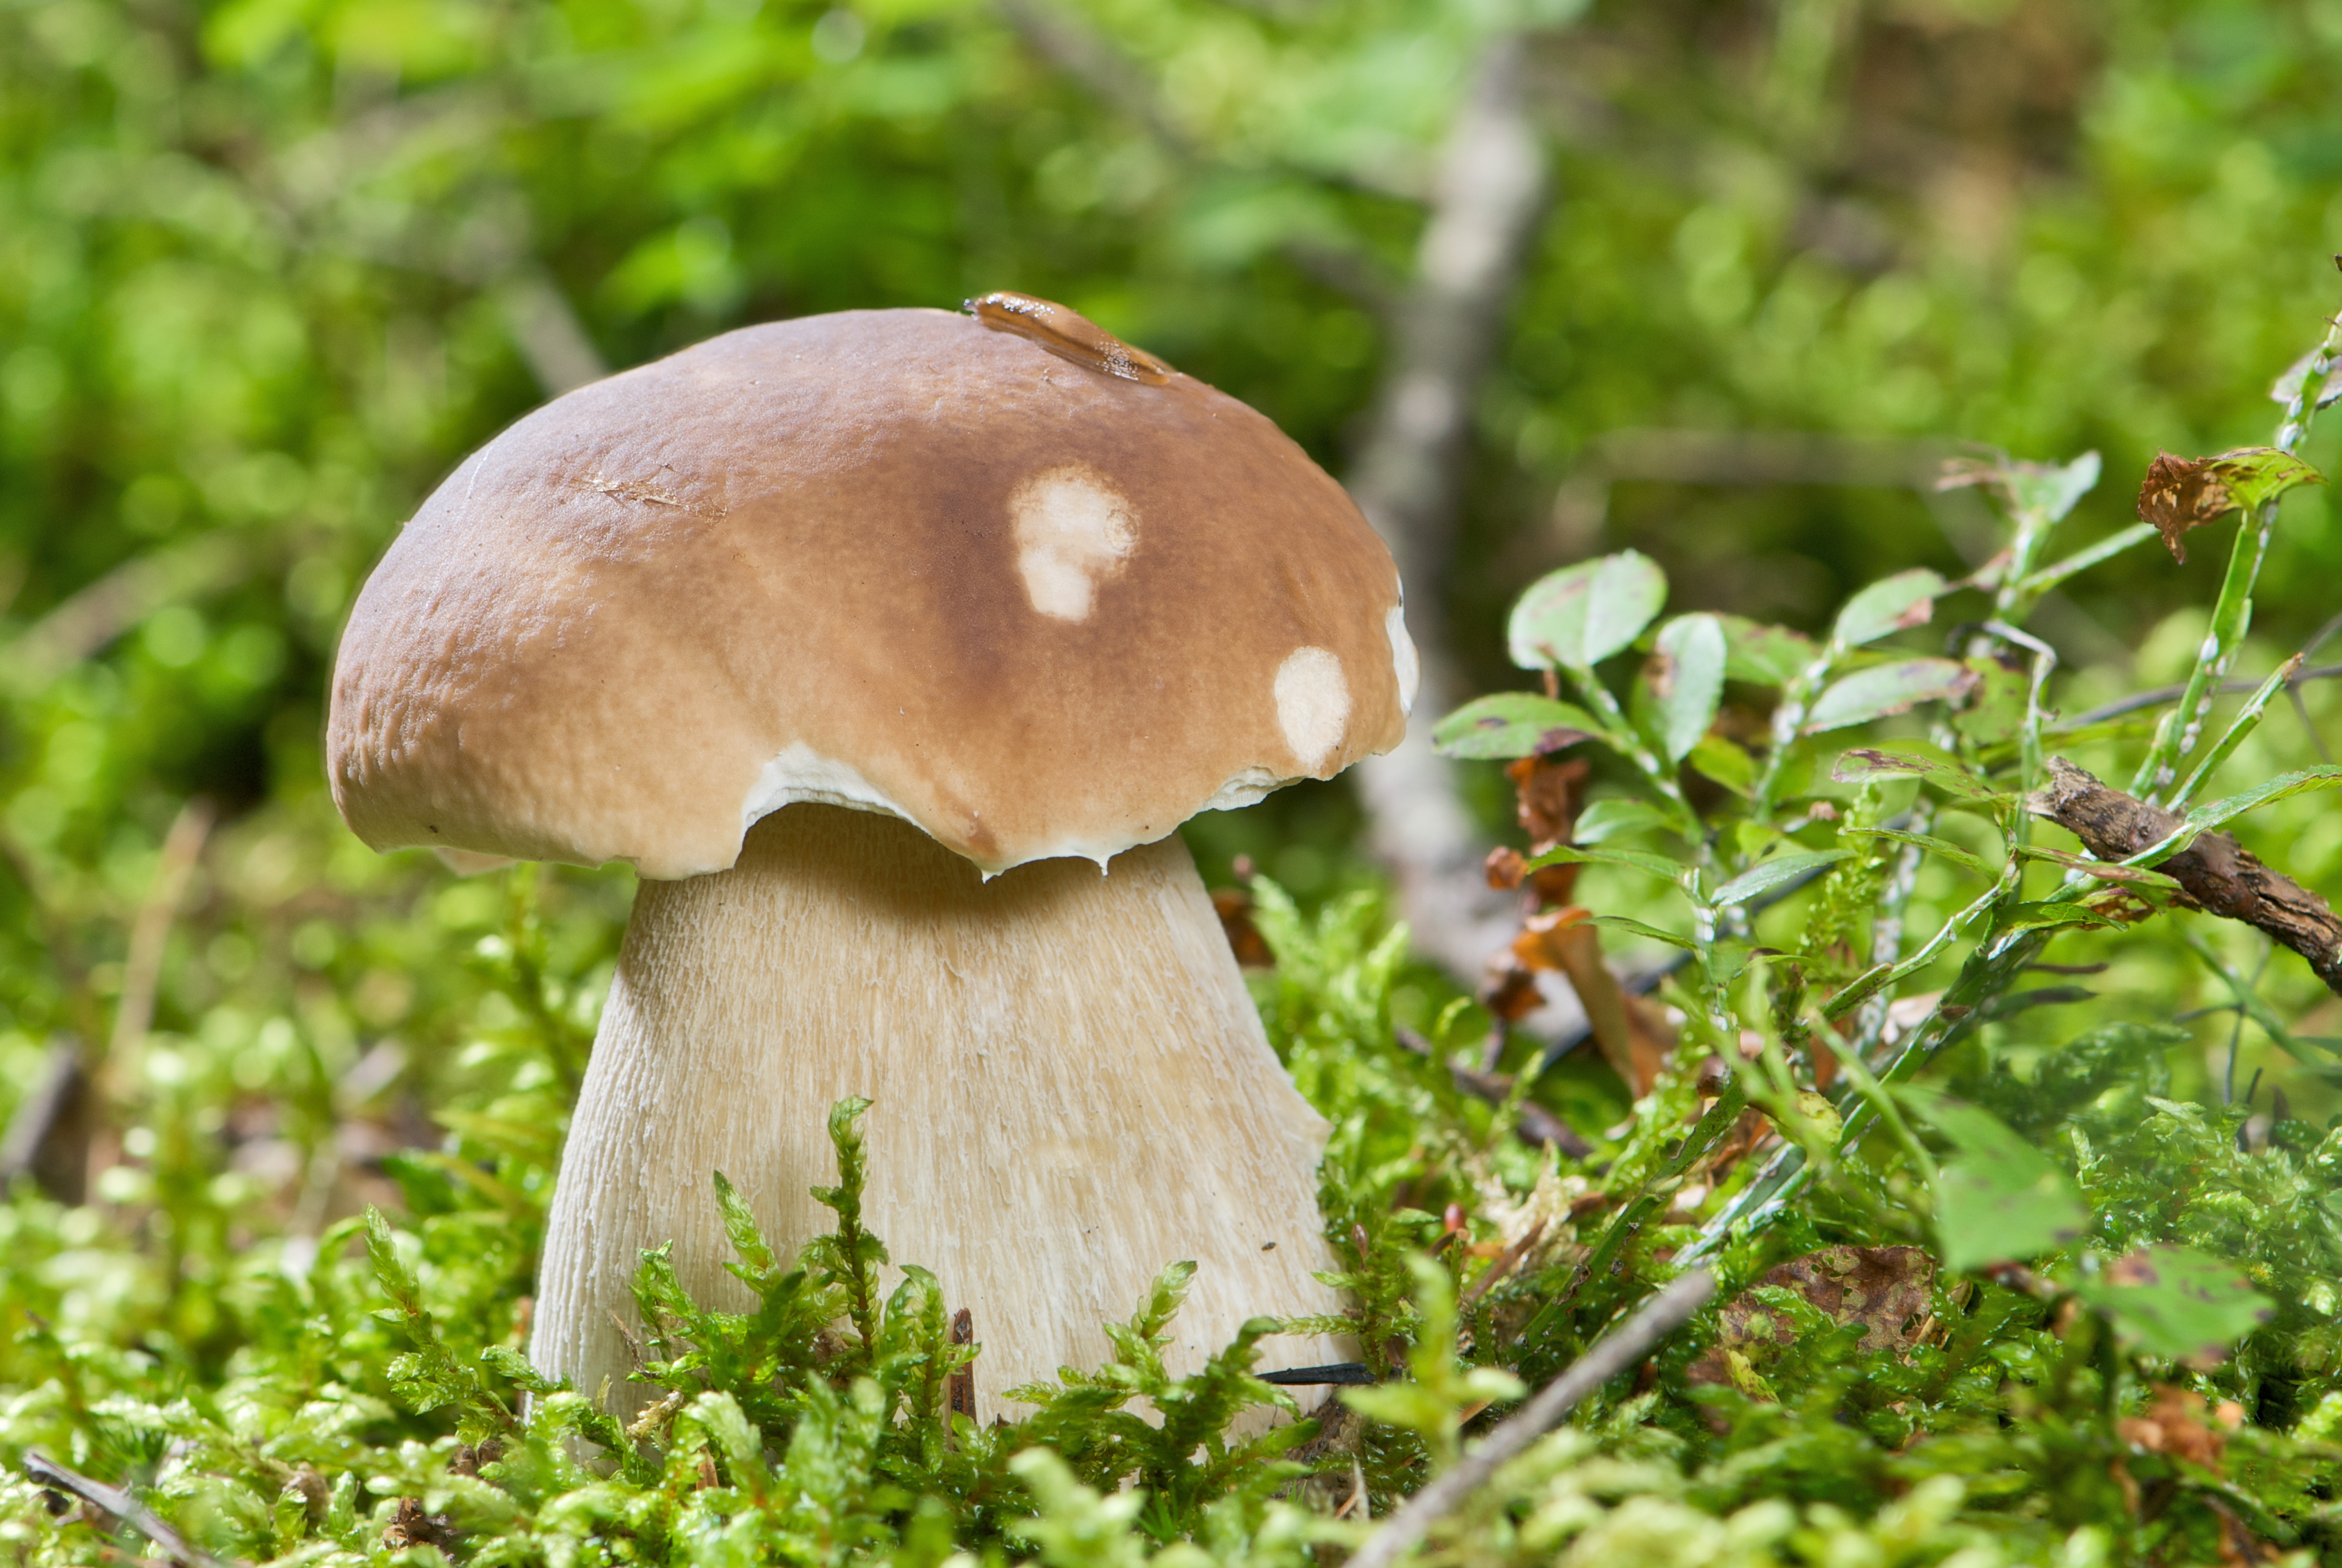


Белый гриб (Boletus edulis) — ценный съедобный гриб, встречающийся в хвойных, лиственных и смешанных лесах на кислых почвах. Образует плодовые тела с мясистой коричневой шляпкой и ножкой, покрытой мелкой беловатой или светло-коричневой сеточкой. Поры трубочек у молодых грибов белые, а у зрелых меняют цвет на желтый или желто-оливковый. Белая мякоть не меняет окраску на срезе. Этот вид образует микоризу с различными деревьями, в частности с елью, пихтой, сосной, буком и березой.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
Шляпка
- Форма шляпки
- у молодых плодовых тел: Форма шляпки: полушаровидный.
у зрелых плодовых тел: Форма шляпки: выпуклый.
у зрелых плодовых тел: Форма шляпки: плоский. - Рельеф поверхности шляпки
- Рельеф поверхности шляпки: гладкий.
Рельеф поверхности шляпки: морщинистый. - Покров шляпки
- Покров шляпки: голая.
- Блеск поверхности шляпки
- во влажном состоянии: Блеск поверхности шляпки: блестящий.
- Клейкость и слизистость шляпки
- во влажном состоянии: Клейкость и слизистость шляпки: липкий.
во влажном состоянии: Клейкость и слизистость шляпки: слизистый. - Цвет шляпки
- Цвет шляпки: бежевый.
Цвет шляпки: коричневый.
Цвет шляпки: Тёмно-коричневый.
у зрелых плодовых тел: Цвет шляпки: Тёмно-коричневый.
у молодых плодовых тел: Цвет шляпки: светло-коричневый.
Цвет шляпки: светло-коричневый.
Цвет шляпки: светло-охристый.
Цвет шляпки: охристо-коричневый.
у зрелых плодовых тел: Цвет шляпки: красно-коричневый.
Цвет шляпки: белый (на краю шляпки). - Диаметр шляпки
- Диаметр шляпки составляет 50–300 mm.
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: трубочки.
Трубочки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: приросший к ножке (трубочки).
- Профиль гименофора у ножки
- Профиль гименофора у ножки: выемчатый у ножки (трубочки).
- Отделяемость гименофора от шляпки
- Отделяемость гименофора от шляпки: легко отделяется (трубочки).
- Форма пор
- у молодых плодовых тел: Форма пор: округлый.
у зрелых плодовых тел: Форма пор: угловатые. - Цвет пор после повреждения
- Цвет пор после повреждения: без изменения цвета.
Цвет пор после повреждения: без изменения цвета. - Окраска трубочек при повреждении
- Окраска трубочек при повреждении: без изменения цвета.
- Естественный цвет пор
- у молодых плодовых тел: Естественный цвет пор: белый.
у зрелых плодовых тел: Естественный цвет пор: жёлтый.
у зрелых плодовых тел: Естественный цвет пор: желто-оливковый.
у зрелых плодовых тел: Естественный цвет пор: оливково-зелёно-жёлтая.
у молодых плодовых тел: Естественный цвет пор: беловатая.
у зрелых плодовых тел: Естественный цвет пор: жёлто-зелёный. - Естественный цвет трубочек
- у зрелых плодовых тел: Естественный цвет трубочек: кремовый.
у зрелых плодовых тел: Естественный цвет трубочек: бледно-жёлтый.
у молодых плодовых тел: Естественный цвет трубочек: белый.
у зрелых плодовых тел: Естественный цвет трубочек: желто-оливковый.
у зрелых плодовых тел: Естественный цвет трубочек: оливково-зелёно-жёлтая.
у молодых плодовых тел: Естественный цвет трубочек: беловатая.
у зрелых плодовых тел: Естественный цвет трубочек: жёлтый.
у зрелых плодовых тел: Естественный цвет трубочек: жёлто-зелёный.
Ножка и основание
- Форма ножки
- у молодых плодовых тел: Форма ножки: бочковидный.
у зрелых плодовых тел: Форма ножки: булавовидный.
Форма ножки: цилиндрический.
Форма ножки: булавовидный.
Форма ножки: сужающийся к основанию. - Основание ножки
- Основание ножки: булавовидное.
Основание ножки: утолщённая. - Цвет ножки
- Цвет ножки: беловатая.
Цвет ножки: светло-коричневый. - Рельеф поверхности ножки
- в верхней части ножки: Рельеф поверхности ножки: сетчатая.
- Длина ножки
- Длина ножки: 20–300 mm.
- Диаметр ножки
- Диаметр ножки: 15–120 mm.
- Цвет сеточки на ножке
- в верхней части ножки: Цвет сеточки на ножке: беловатая.
в верхней части ножки: Цвет сеточки на ножке: светло-коричневый.
в верхней части ножки: Цвет сеточки на ножке: белый.
Мякоть
- Цвет мякоти
- Цвет мякоти: белый.
Цвет мякоти: красно-коричневый (мякоть шляпки, под кожицей).
Цвет мякоти: розоватый (мякоть шляпки, под кожицей).
Цвет мякоти: коричневатый (мякоть у основания ножки). - Плотность мякоти
- у молодых плодовых тел: Плотность мякоти: плотный.
у зрелых плодовых тел: Плотность мякоти: мягкий. - Вкус мякоти
- Вкус мякоти: слабый.
- Упругость мякоти
- у молодых плодовых тел: Упругость мякоти: упругий.
- Структура мякоти
- у зрелых плодовых тел: Структура мякоти: ватообразный.
у старых плодовых тел: Структура мякоти: губчатый. - Цвет мякоти после повреждения
- Цвет мякоти после повреждения: без изменения цвета.
Цвет мякоти после повреждения: без изменения цвета.
Цвет мякоти после повреждения: без изменения цвета. - Запах мякоти
- Запах мякоти: грибной, слабый.
Запах мякоти: слабый. - Оттенок вкуса мякоти
- Оттенок вкуса мякоти: ореховый.
Где и когда растёт
- Местообитание
- Местообитание: хвойный лес.
Местообитание: лиственный лес.
Местообитание: смешанный лес. - Субстрат
- Субстрат: почва.
- Характер роста плодовых тел
- Характер роста плодовых тел: одиночно.
Характер роста плодовых тел: группами. - Частота встречаемости
- Частота встречаемости: обычный.
- Период плодоношения
- Плодовые тела появляются с июня по ноябрь.
- Ареал распространения
Съедобность и кулинария
- Съедобность
- Съедобный
- Кулинарная оценка
- Очень вкусный
Законодательство
Нормы для локации: Польша
- Охрана
- В Польше Boletus edulis не подлежит установленной законом охране видов.
- Торговля
- Допущен к продаже
С чем можно спутать
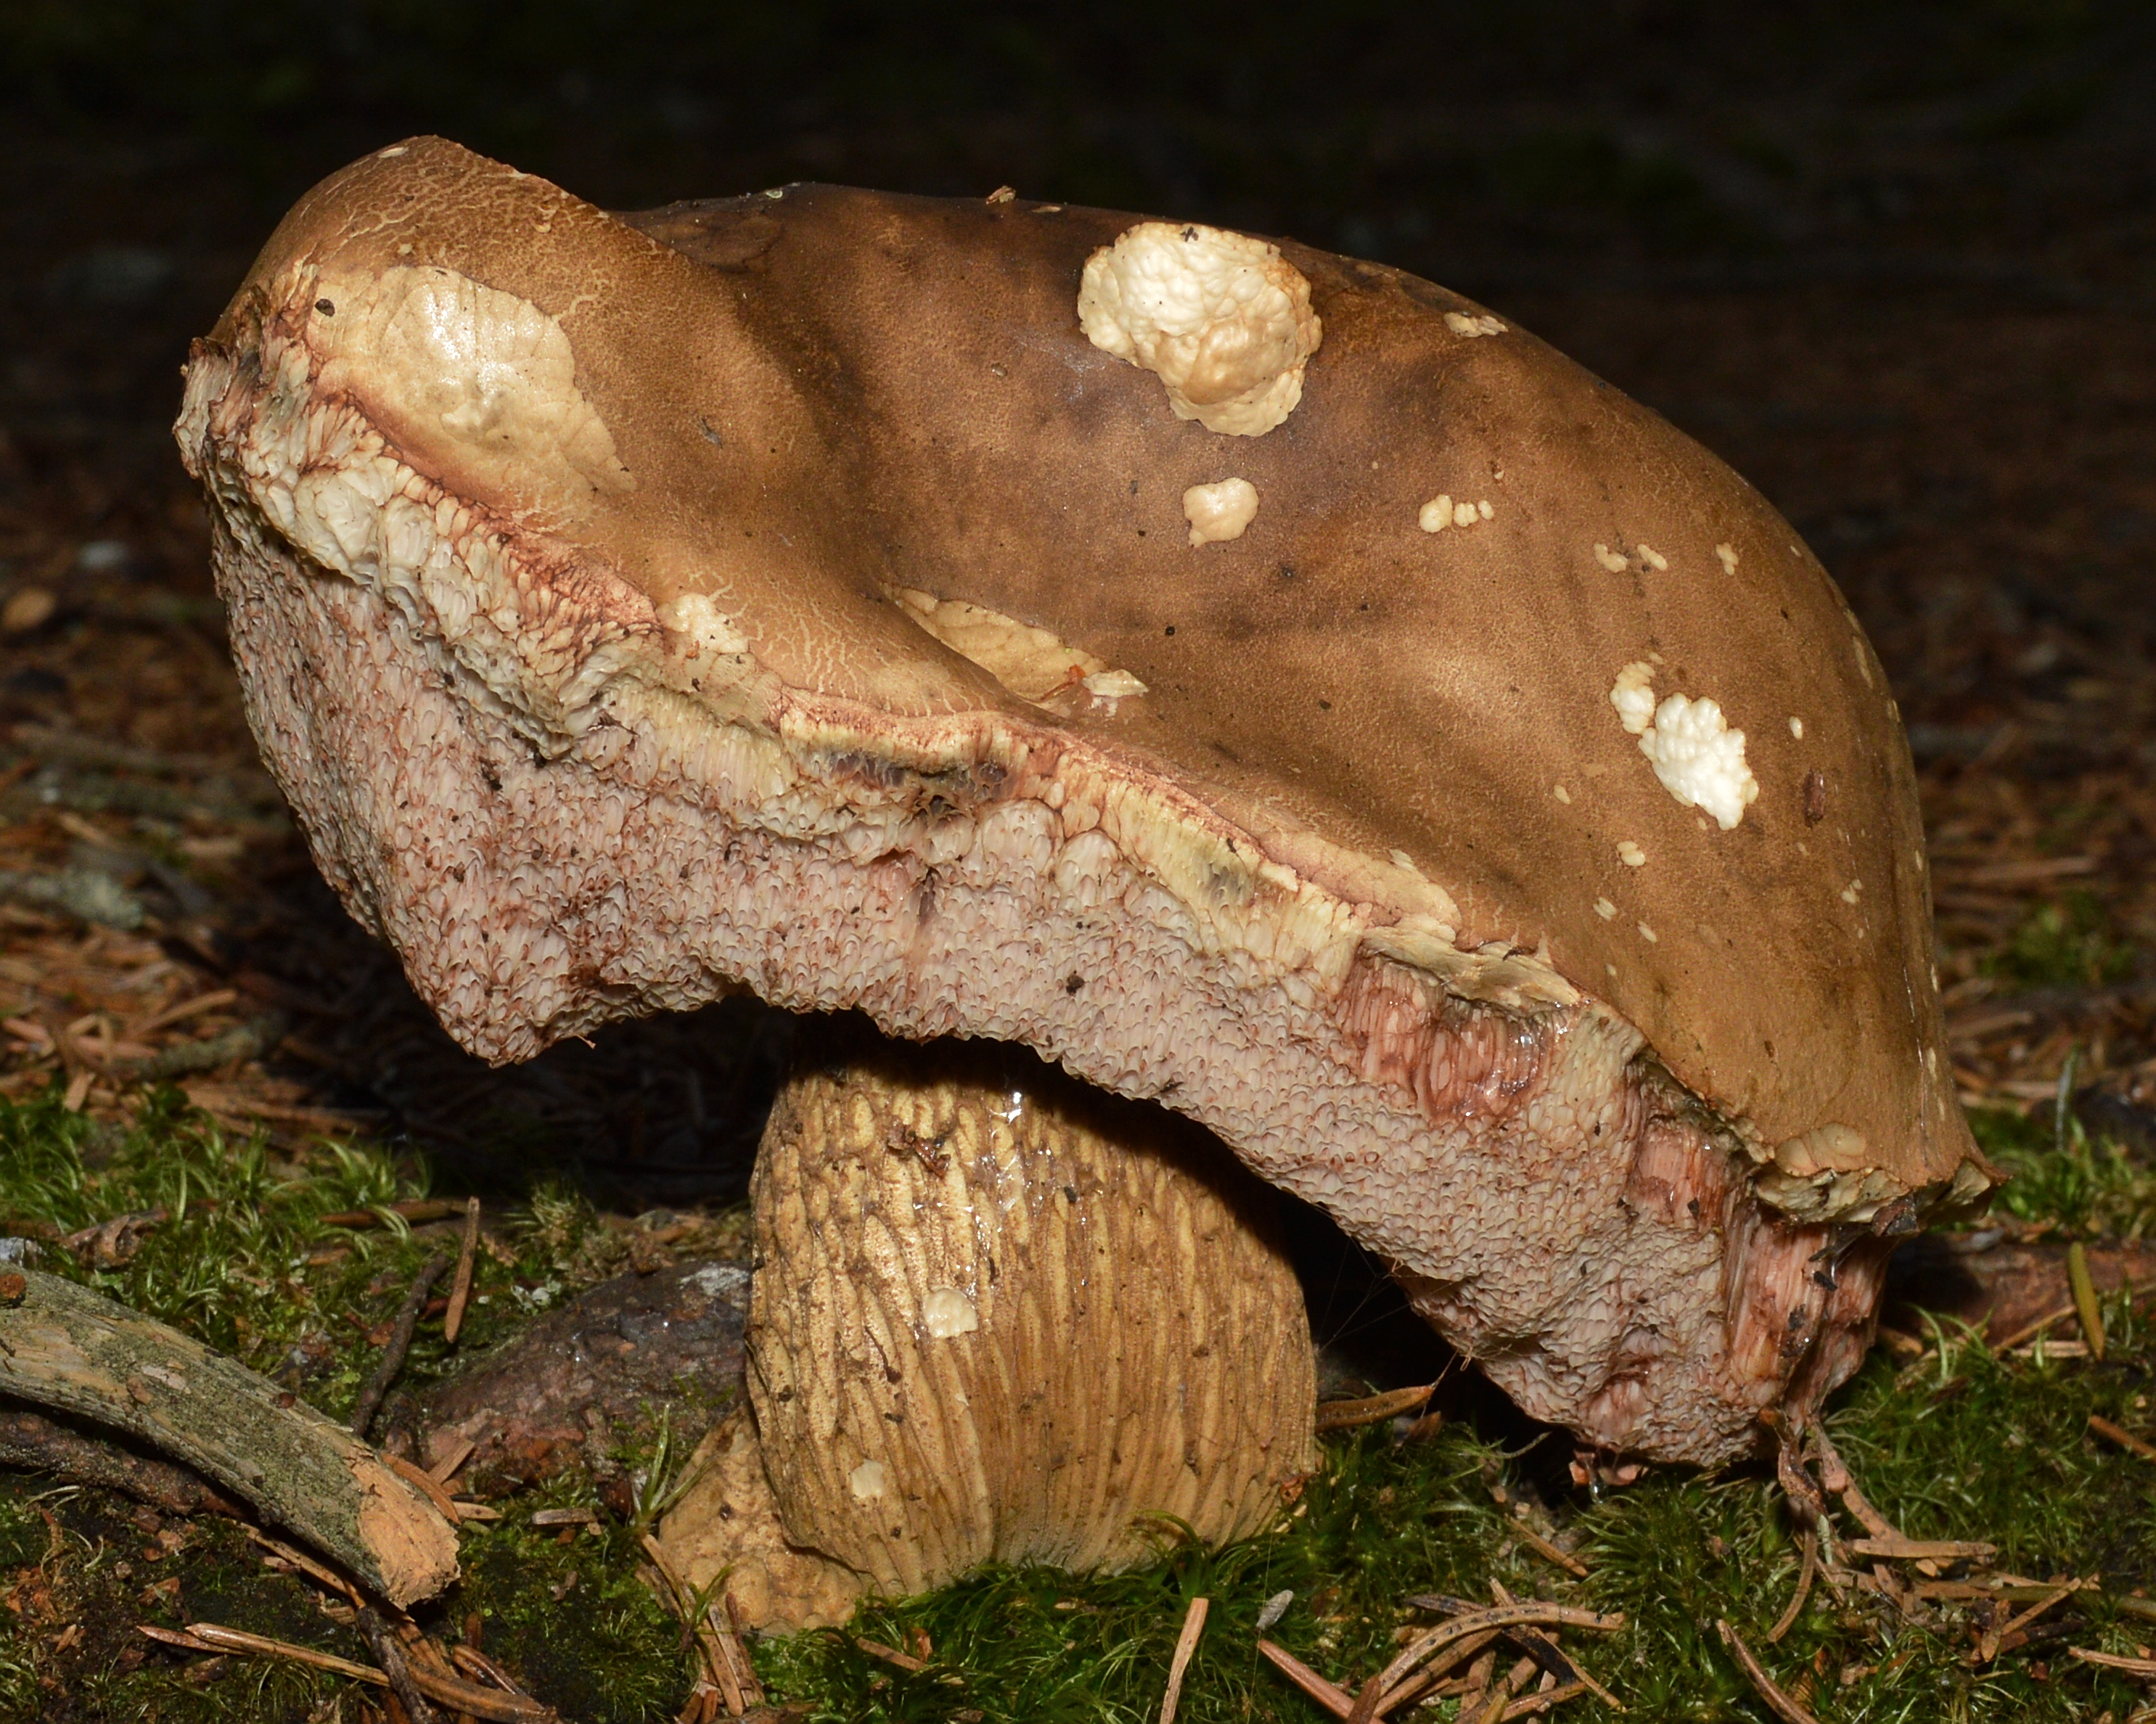
Tylopilus felleus
Основные различия
Желчный гриб (Tylopilus felleus) у молодых экземпляров имеет беловатые поры, из-за чего его иногда путают с белым грибом. Однако по мере созревания его поры становятся грязно-розовыми, сеточка на ножке толстая, темная и выпуклая, а шляпка остается матовой и замшевой. Мякоть желчного гриба отличается интенсивной горечью, которая не исчезает при варке или сушке, вследствие чего даже один экземпляр портит вкус всего блюда.
Белый гриб (Boletus edulis) напоминает молодой желчный гриб общим силуэтом и коричневой шляпкой. Он отличается, однако, более светлой, изначально белой ножкой, покрытой тонкой светлой сеточкой (заметной главным образом в ее верхней части). Кроме того, трубочки и поры белого гриба с возрастом меняют окраску с белой на желто-зеленую и оливково-зеленую, тогда как у желчного гриба они розовеют.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Источник фотографии · Public domainBoletus reticulatus
Основные различия
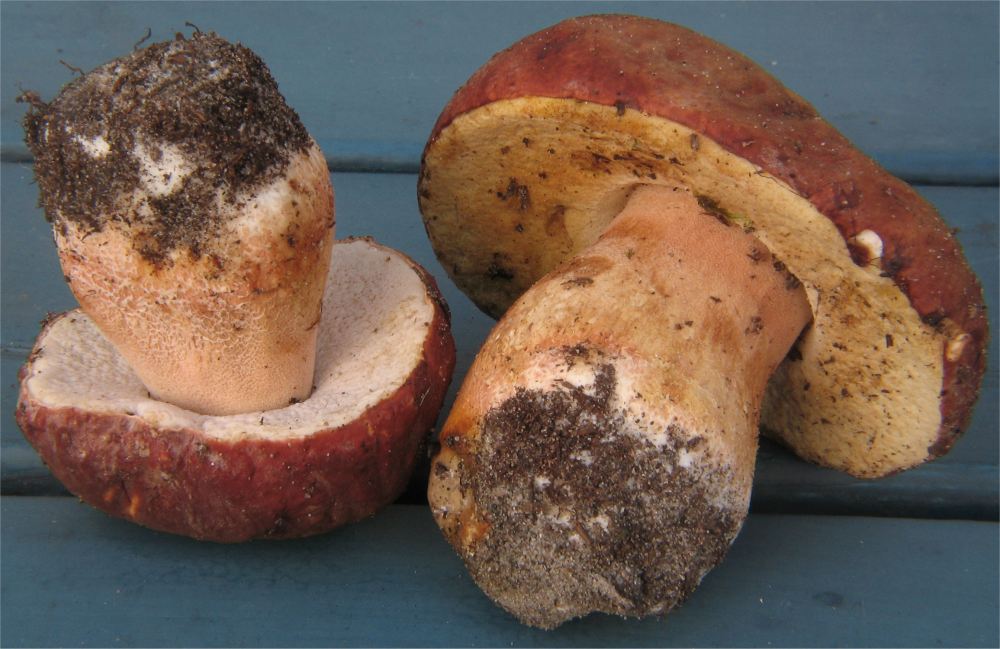
Белый гриб сетчатый (Boletus reticulatus) отличается шляпкой с матовой, замшевой или долго остающейся белесоватой поверхностью, которая во время засухи часто растрескивается на мелкие участки, а также отчётливой сеточкой, нередко покрывающей почти всю ножку. Встречается в основном под буками и дубами, появляясь, как правило, раньше в сезоне, чем белый гриб. Из-за изменчивости признаков поверхности и выраженности сеточки у обоих видов протяжённость ячеек на ножке не всегда позволяет однозначно их различить.
Белый гриб (Boletus edulis) обычно имеет более гладкую поверхность шляпки, которая в сырую погоду становится клейкой и слизистой, а по её краю часто заметна узкая более светлая кайма. Сеточка на ножке белого гриба в целом более тонкая и ограничена преимущественно верхней частью. У сетчатого боровика шляпка обычно сухая, замшевая и склонная к растрескиванию, а сеточка на ножке светлее и выразительнее, хотя сама протяжённость сетки не служит надёжным решающим критерием.
Boletus pinophilus
Основные различия
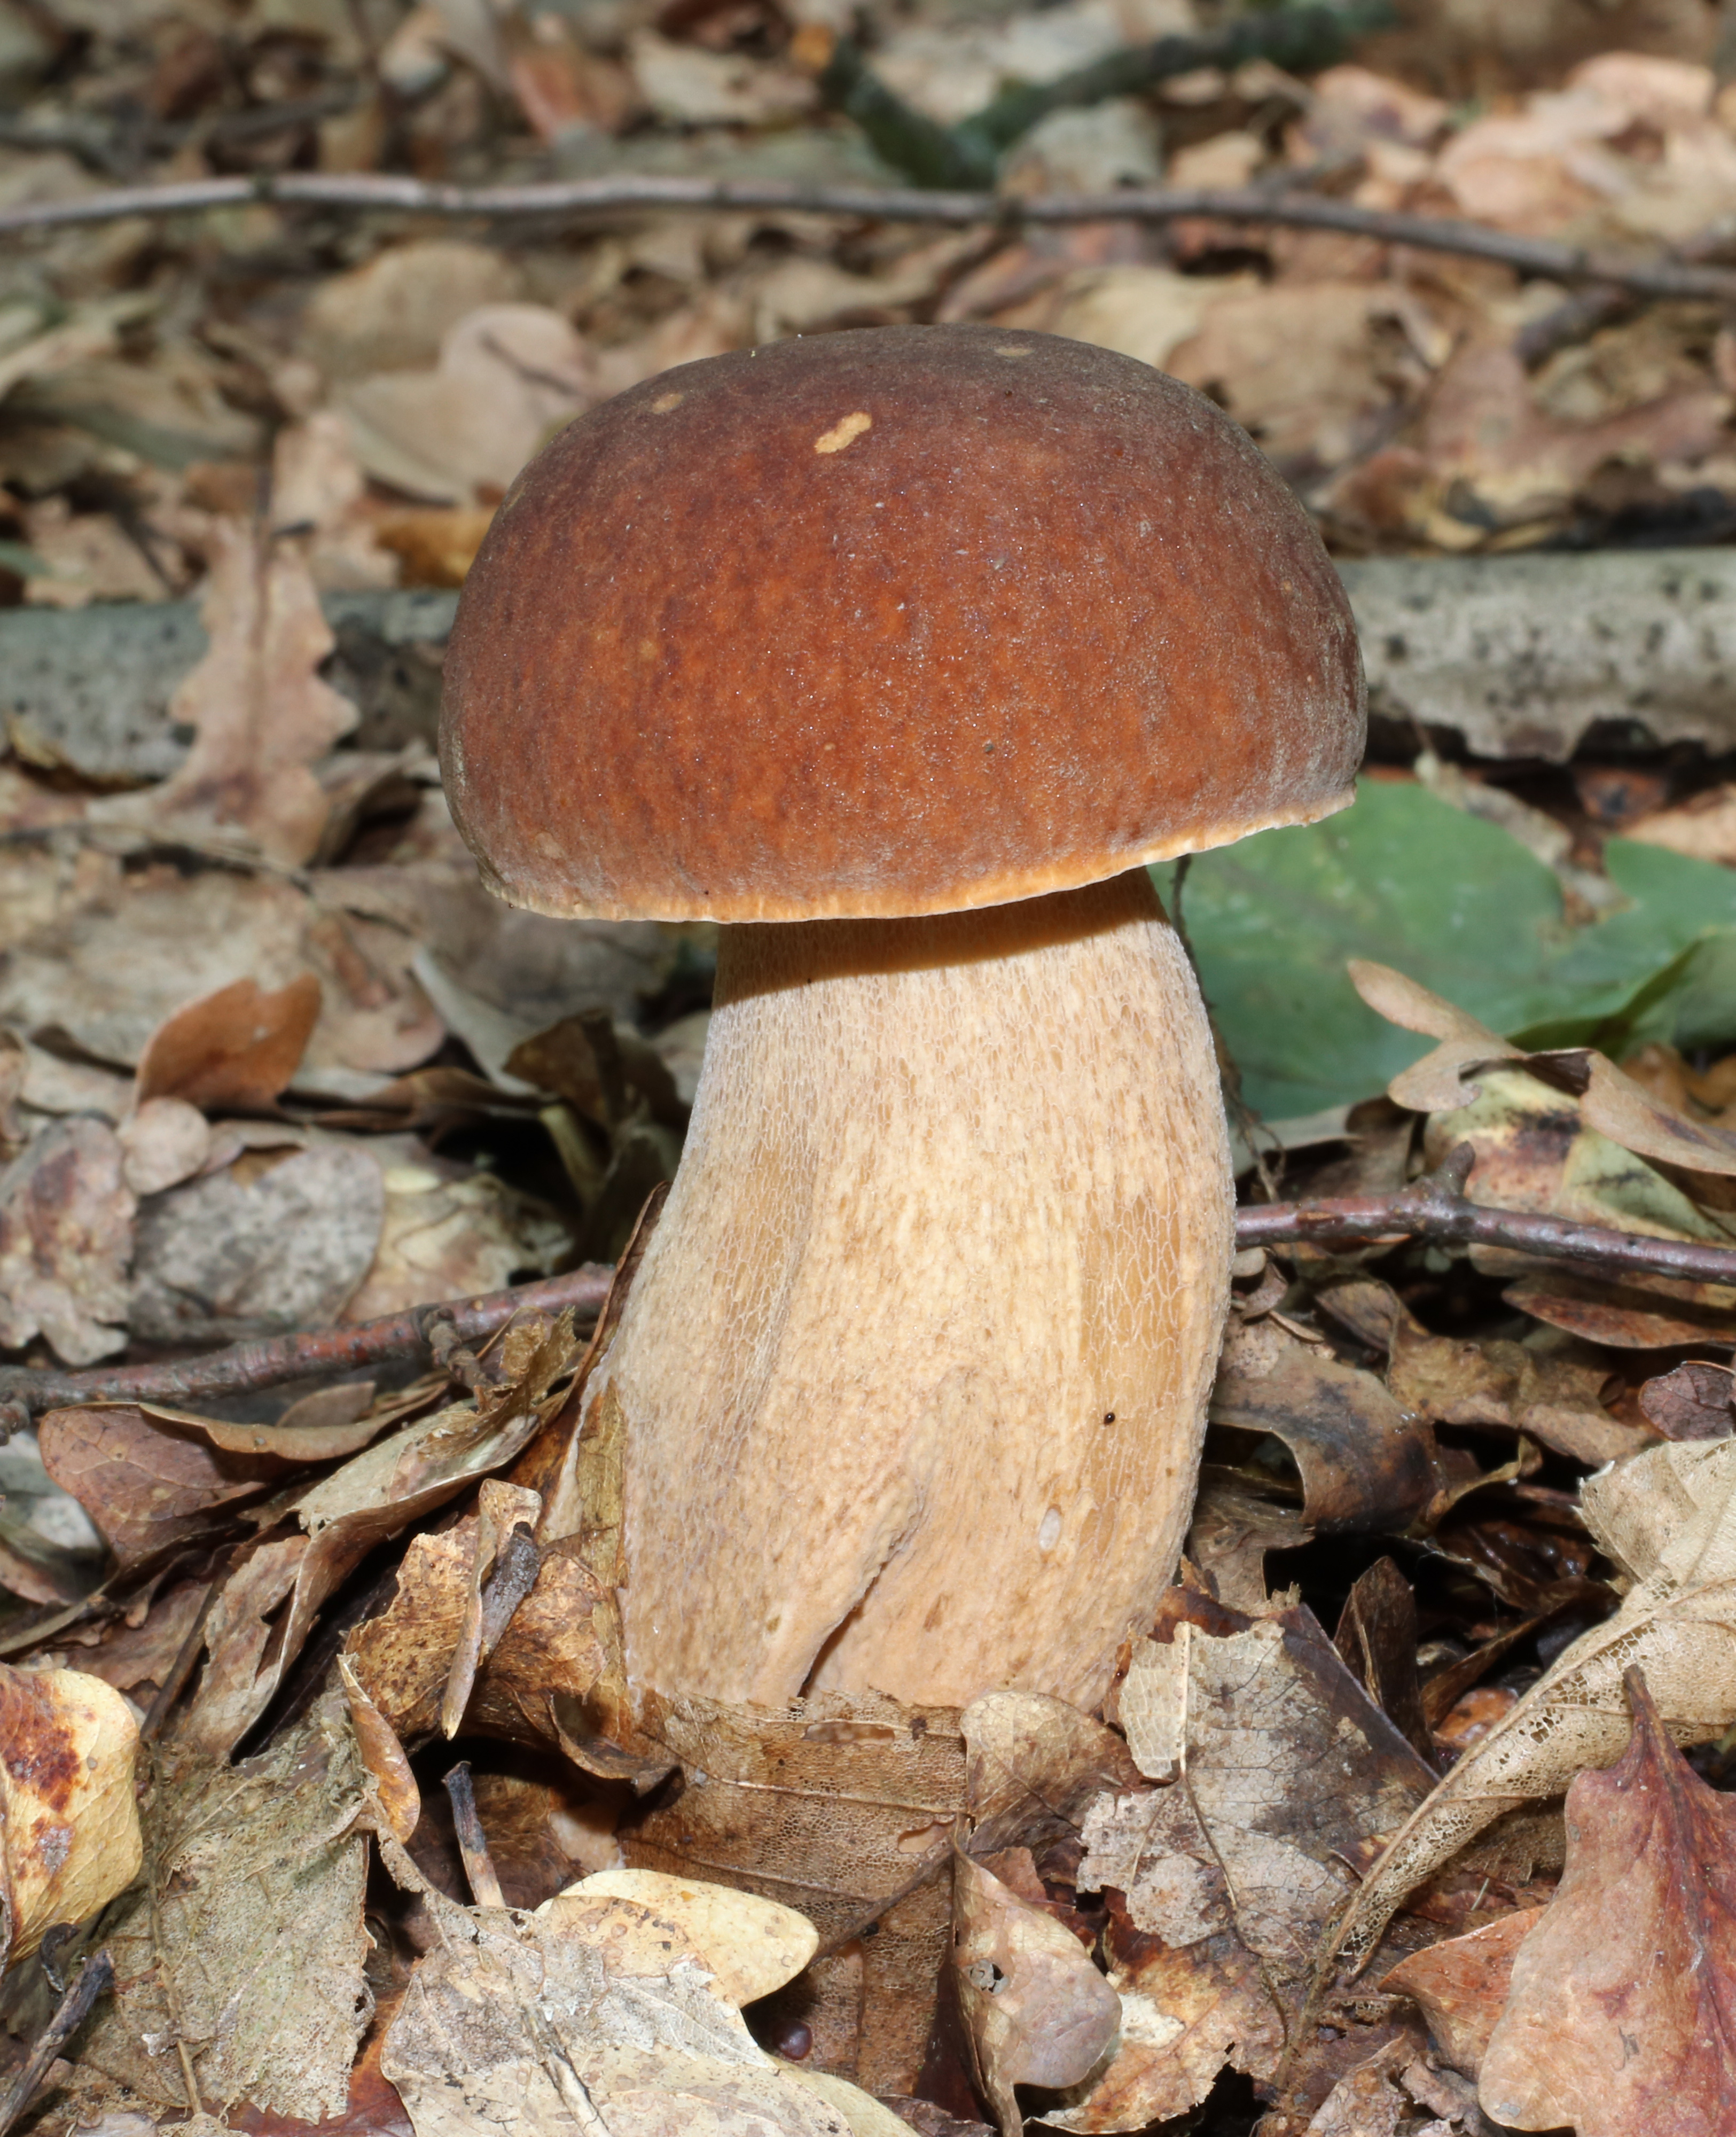
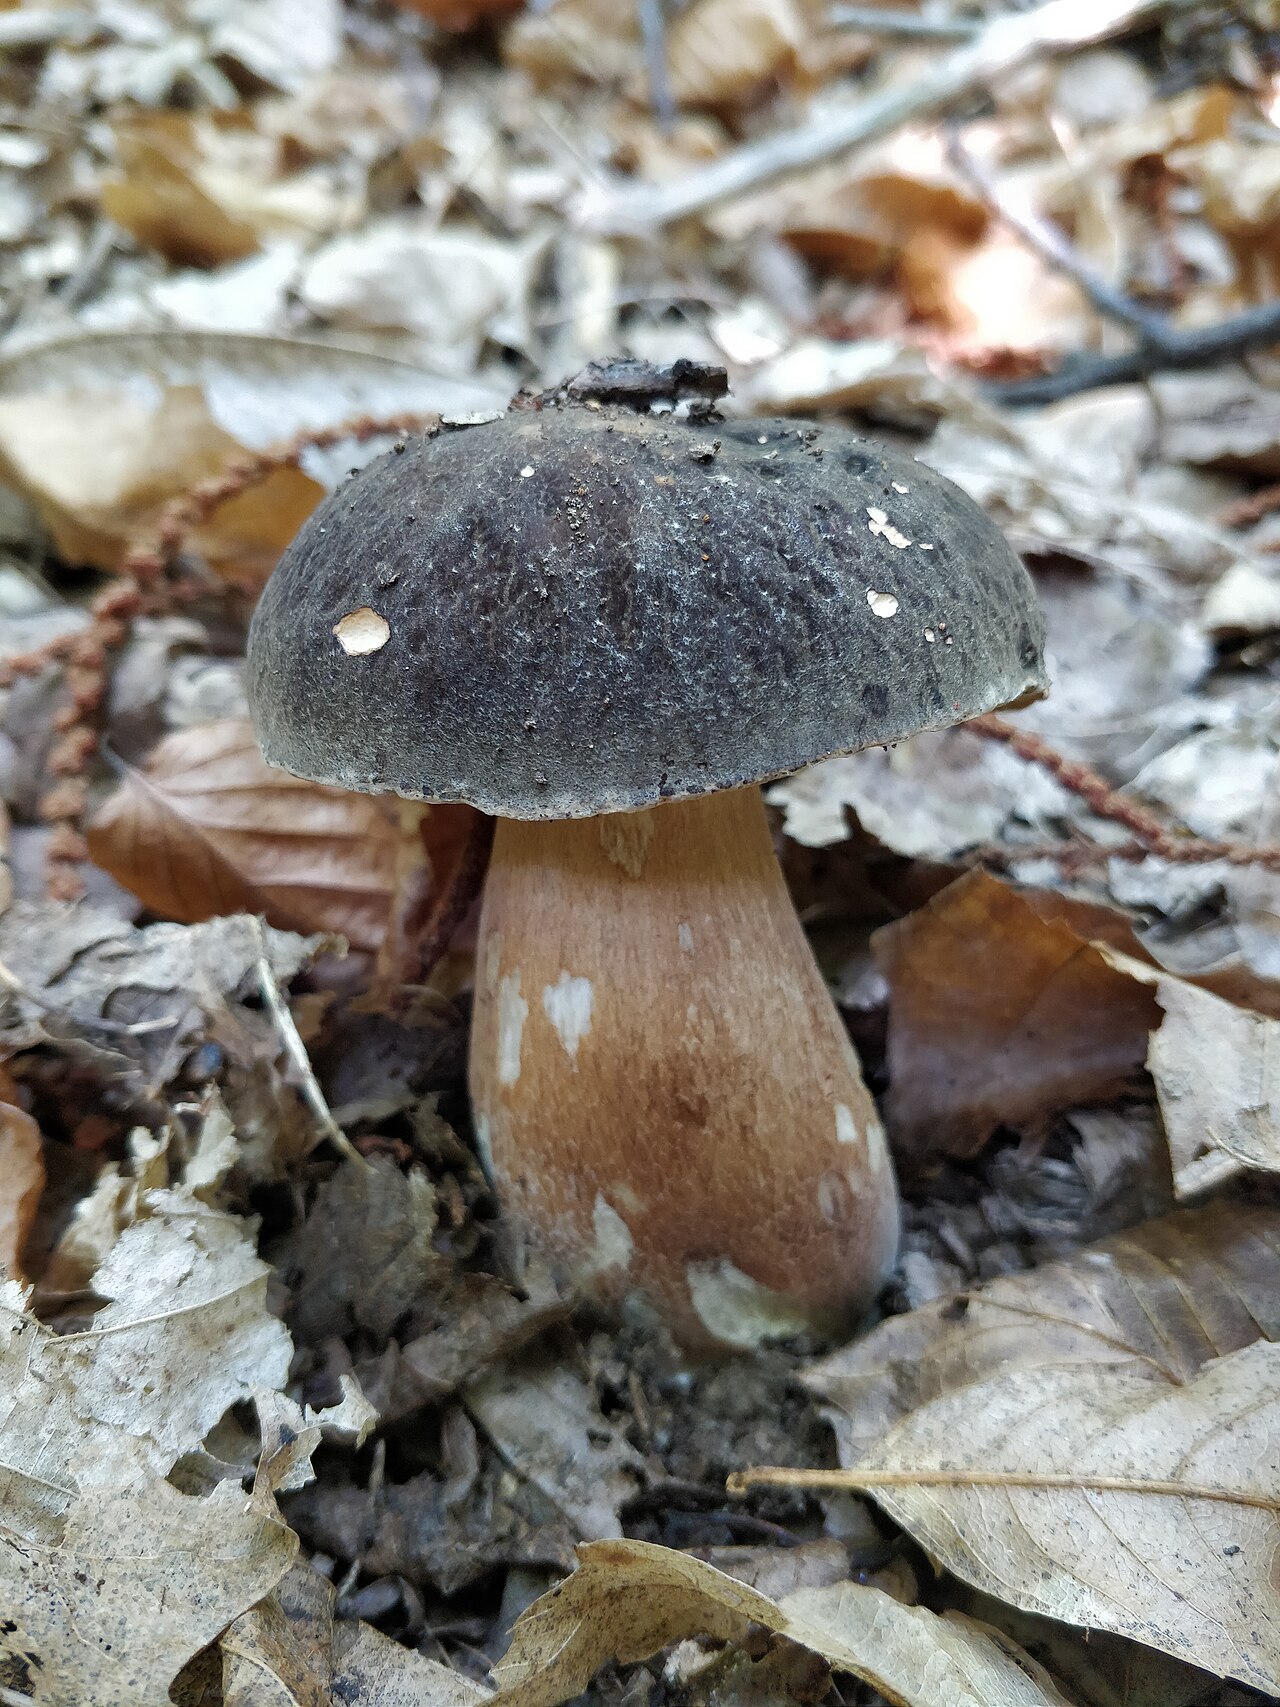
Боровик сосновый (Boletus pinophilus) характеризуется тёмной, красно-коричневой или почти чёрно-коричневой шляпкой и растёт преимущественно в симбиозе с соснами. В микроскопическом строении он отличается толстой, желатинизированной кожицей и концевыми элементами шириной до 27 мкм, содержащими красно-коричневый пристеночный инкрустирующий пигмент, растворяющийся в гидроксиде калия (KOH).
Белый гриб (Boletus edulis) может иметь шляпку оттенков от светло-коричневого до тёмно-коричневого, иногда с желтоватым или красноватым тоном, однако его поверхность голая, слегка маслянистая, а сеточка на ножке обычно мелкая и ограничена верхней частью. Микроскопически концевые элементы кожицы B. edulis имеют ширину 4–19 мкм, а пигмент содержится внутри клеток. Наличие красноватого оттенка и соседство сосен не являются признаками, свойственными исключительно B. pinophilus, поскольку B. edulis также растёт в сосновых борах на бедных кислых песках.
Boletus aereus
Основные различия
Белый гриб (Boletus edulis) отличается гладкой, во влажных условиях жирноватой на ощупь кожицей шляпки, более широкой палитрой светлых и темных оттенков коричневого, а также беловатой сеточкой, присутствующей обычно в верхней половине ножки (реже спускающейся ниже). Микроскопически концевые элементы кожицы шляпки у B. edulis имеют ширину 4–19 мкм, тогда как у B. aereus шляпка сухая, мелковойлочная и очень темная, хотя отдельные признаки окраски могут перекрываться.
Белый гриб темно-бронзовый (Boletus aereus) встречается в теплых лиственных лесах, преимущественно дубовых, также на известковых почвах, реже под каштанами. Имеет очень темную, сухую, слегка опушенную шляпку. Под микроскопом концевые элементы его кожицы достигают ширины до 11 мкм и содержат мелкозернистый внутриклеточный пигмент.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Источник фотографии · CC BY 3.0Caloboletus calopus
Основные различия
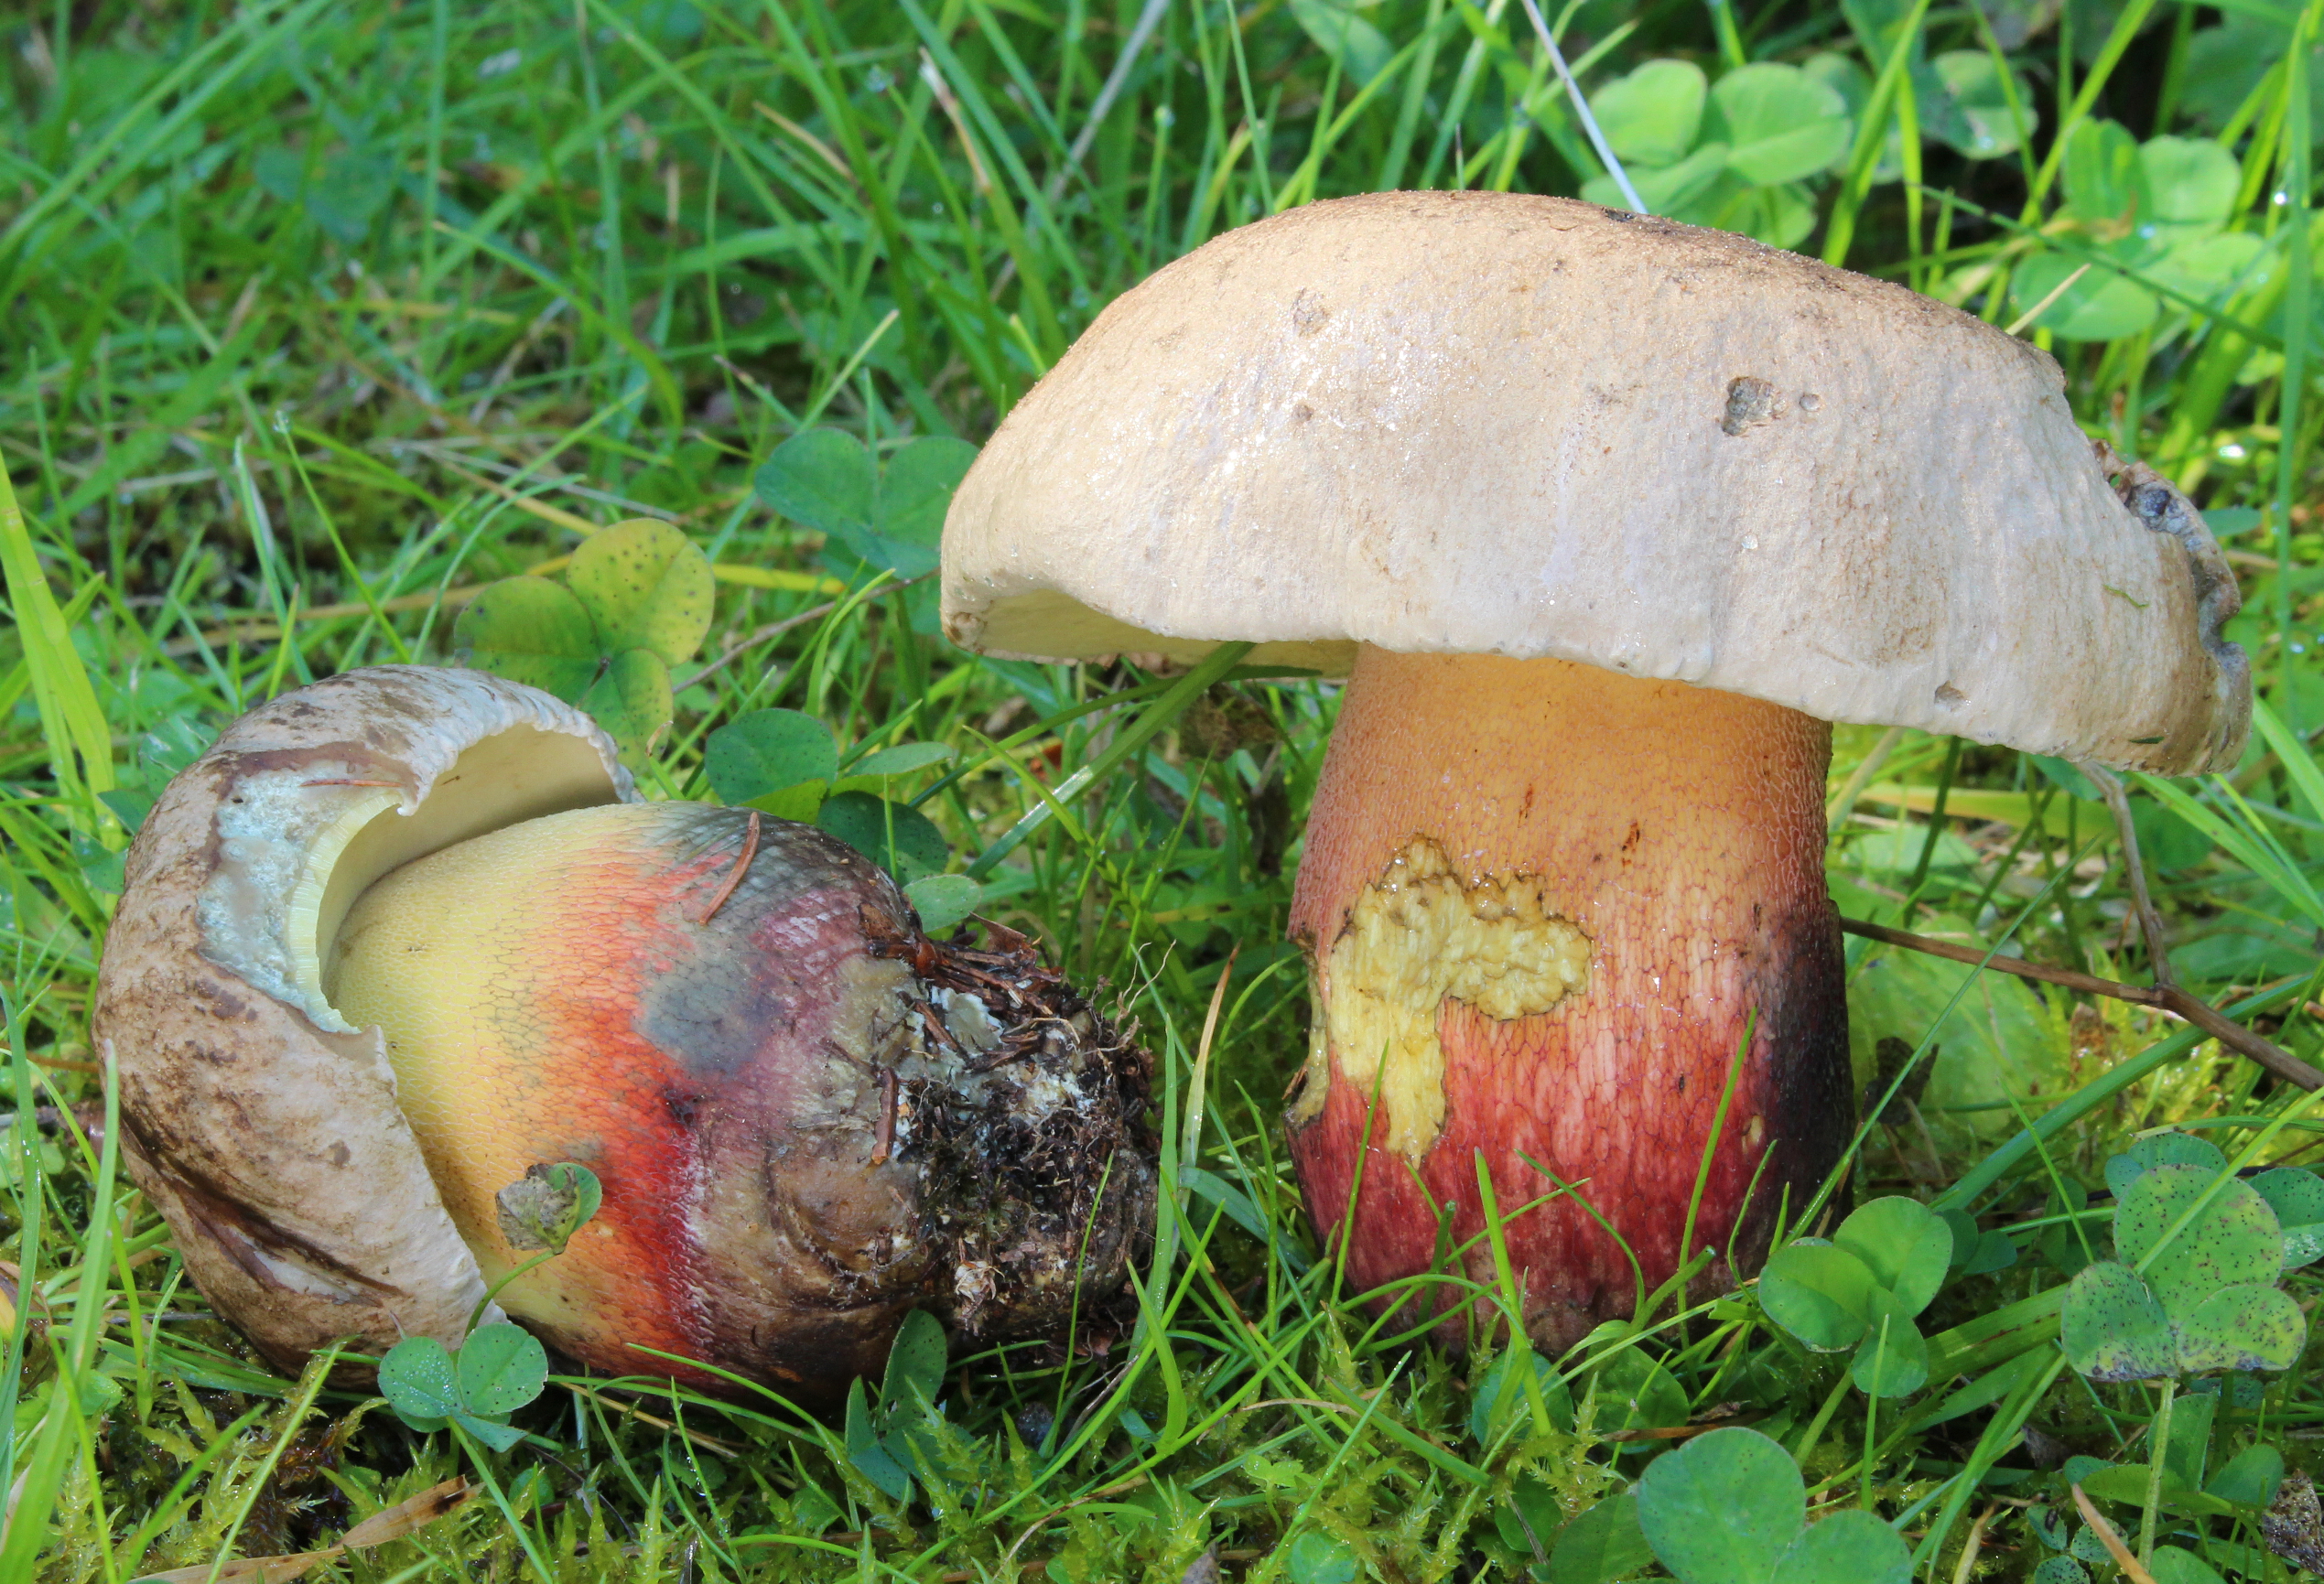
Ошибочное принятие за белый гриб (Boletus edulis) в полевых условиях возможно главным образом при беглом взгляде сверху на молодые плодовые тела. Белый гриб отличается коричневой шляпкой, трубочками от белых до желто-зеленых, которые не синеют при надавливании, а также светлой ножкой без следов яркого красного цвета и мягким приятным вкусом.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Источник фотографии · CC BY-SA 4.0Imleria badia
Основные различия
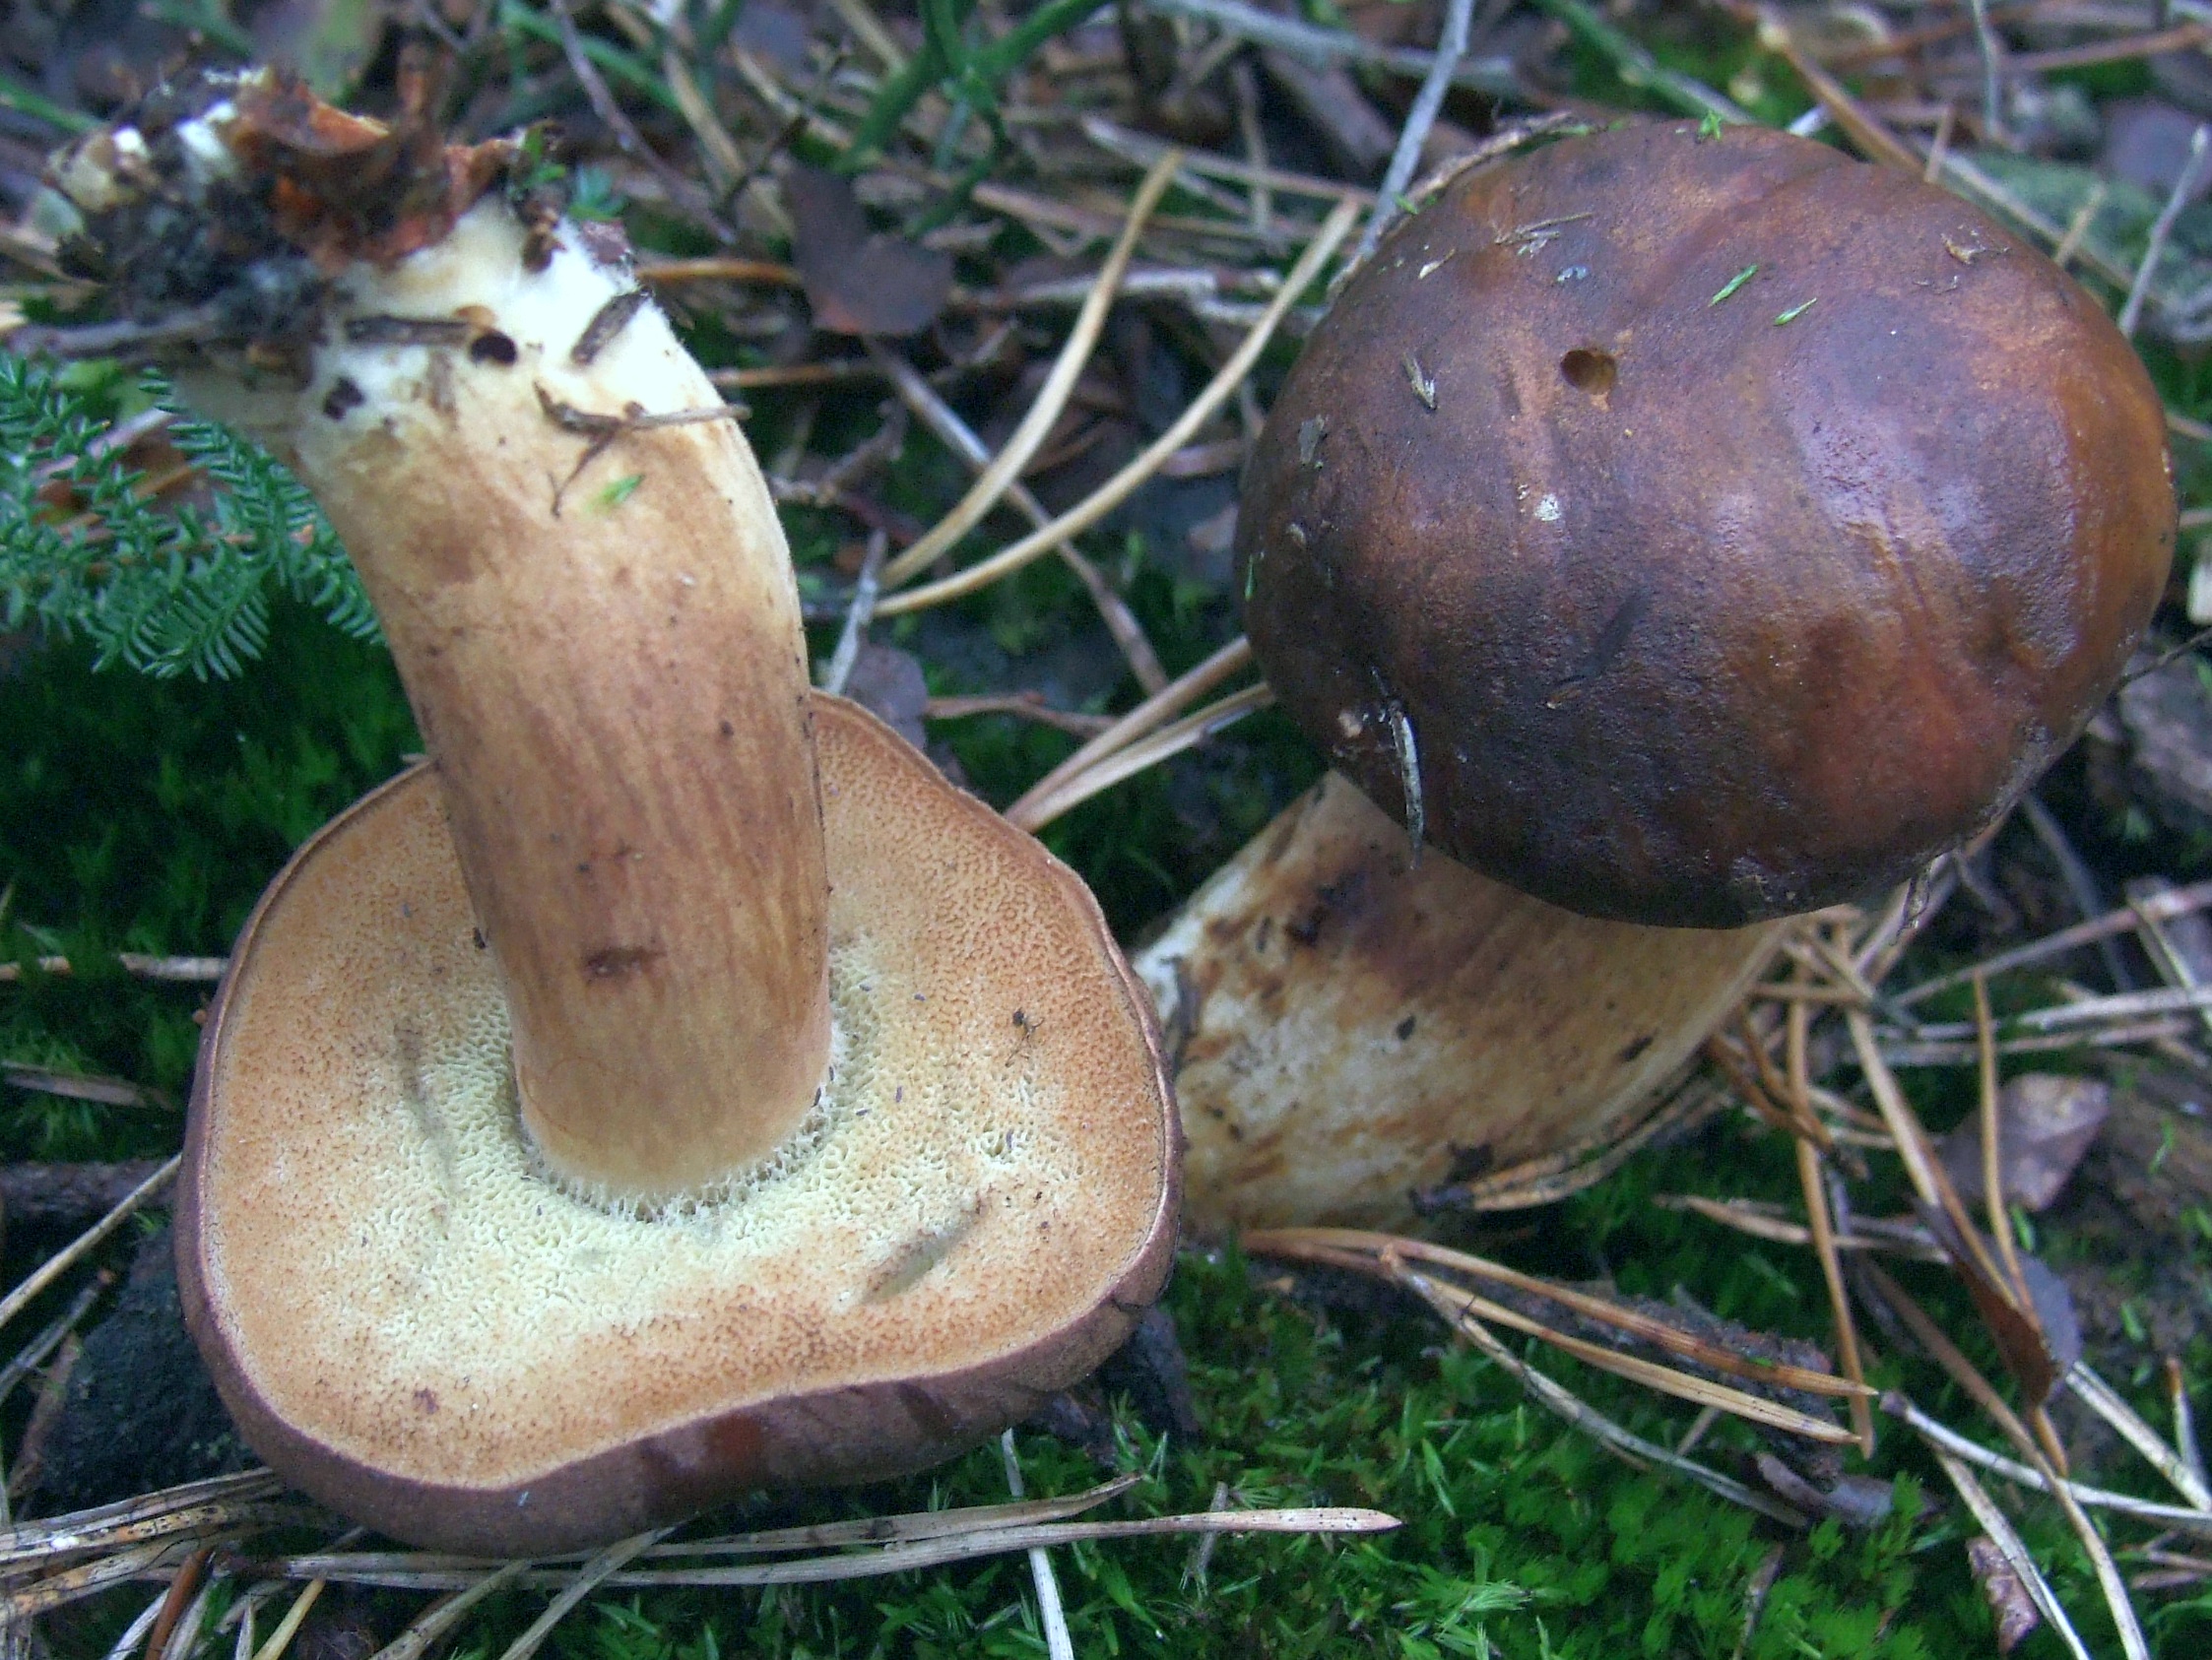
Польский гриб (Imleria badia) и белый гриб (Boletus edulis) — популярные съедобные грибы. У белого гриба ножка со светлой сеточкой, а поры сначала белые, с возрастом становящиеся от жёлтых до жёлто-оливковых, которые при надавливании не меняют цвет. Его мякоть на срезе остаётся белой. У польского гриба ножка коричневатая, без сеточки, а поры при надавливании отчетливо синеют. Мякоть польского гриба на срезе синеет, особенно в шляпке и над трубочками.
FAQ
Синеет ли белый гриб на срезе?
Нет. Мякоть белого гриба не меняет окраску на срезе — она не синеет и не темнеет при контакте с воздухом. Отсутствие изменения окраски на срезе — важный диагностический признак.
Может ли шляпка белого гриба быть скользкой?
Да. В сырую погоду шляпка бывает скользкой, липкой или слизистой и блестящей, а у молодых плодовых тел — слегка клейкой. Сама поверхность шляпки бывает гладкой или морщинистой.
У каждого ли белого гриба темно-коричневая шляпка?
Нет. Окраска шляпки бывает изменчивой: от светло-коричневой через ореховую до темно-коричневой и красно-коричневой. В широком понимании вида учитываются также формы с еще более светлой окраской.
Боровик и белый гриб — это одно и то же?
«Боровик» — это обиходное название белого гриба, однако в разговорной речи оно также применяется к нескольким похожим видам боровиков, собираемым грибниками.
Почему у белого гриба поры бывают то белыми, то желто-оливковыми?
Это зависит от зрелости плодового тела. У молодых грибов поры белые, а у зрелых становятся жёлтыми или жёлто-оливковыми. С возрастом мелкие округлые поры к тому же становятся угловатыми.
Усиливает ли сушка запах белого гриба?
Да. Свежие плодовые тела имеют слабый грибной запах, тогда как сушка заметно усиливает аромат. Высушенный белый гриб пахнет значительно сильнее и является традиционным ингредиентом польских супов и вареников.
Насколько большой может быть шляпка белого гриба?
В польских источниках Сноварский указывает диаметр 60–250 мм, а чешский Тейкал — 50–250 мм. В свою очередь, публикации Муньоса и Корхонена отмечают для белого гриба шляпки, достигающие 300 мм (30 см).
Как отличить белый гриб от желчного гриба?
У желчного гриба тёмная, толстая сеточка на ножке и зрелые поры с розовым оттенком. У белого гриба сеточка мелкая, беловатая или светло-коричневая, а зрелые поры — от жёлтых до жёлто-оливковых.
Когда можно найти белый гриб?
Это зависит от регионального контекста. В польских источниках период появления определяется как лето и осень, тогда как в Чехии гриб плодоносит в регулярный период с июня по октябрь.
Под какими деревьями растёт белый гриб?
Белый гриб растёт в хвойных, лиственных и смешанных лесах. Он образует микоризные связи с различными деревьями: источники упоминают ель, пихту, сосну, бук и берёзу.
Любитель
Нижняя сторона шляпки
- Длина трубочек
- Длина трубочек: 5–30 mm.
Названия и история
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Наблюдения дома
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: коричневый. Цвет спорового отпечатка: зеленый.
- Оттенок спорового отпечатка
- Оттенок спорового отпечатка: тёмно-оливково-коричневый. Оттенок спорового отпечатка: коричнево-оливковый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: веретеновидный. Форма споры: удлинённо-эллипсоидный. Форма споры: веретеновидный. Форма споры: веретеновидный. Форма споры: эллипсоидный.
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 12–19,5 µm, ширина 4–7 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Реакция почвы
- Реакция почвы: кислый.
- Известковость почвы
- Известковость почвы: неизвестковая.
- Микоризные партнёры
- Общая связь вида: Микоризные партнёры: Picea (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Abies (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Pinus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Fagus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Betula (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Picea abies (общий перечень партнёров).
Некулинарное применение
В области некулинарного применения белого гриба научные источники (в частности, публикация в IMA Fungus, doi:10.1186/s43008-024-00156-7) отмечают немногочисленные локальные этномикологические свидетельства. В полевых исследованиях традиционных знаний о грибах зафиксировано сообщение о народной практике местного применения плодовых тел этого вида при кожных заболеваниях.
Эта запись представляет собой исключительно описание зафиксированного этномикологического свидетельства и элемент местного травнического фольклора, без научного подтверждения биологической эффективности или лечебного действия. Современная микологическая и этнобиологическая литература рассматривает данное упоминание лишь как свидетельство старинных обычаев, не формулируя каких-либо терапевтических или медицинских рекомендаций либо рецептов применения. Любое некулинарное использование белого гриба носило маргинальный и исторический характер по сравнению с его повсеместным пищевым назначением.
История и культура
Белый гриб занимает фундаментальное место в европейской культуре и лесных традициях, будучи общепризнанно самым престижным грибом в традициях собирательства. В истории научной микологии ключевым моментом стало формальное описание и присвоение видового названия Boletus edulis французским естествоиспытателем Жаном-Батистом Бюльяром в 1782 году.
В польской литературной традиции образ белого гриба запечатлен в III книге эпопеи «Пан Тадеуш» Адама Мицкевича («Кокетство»), где при описании сбора грибов упоминается белый гриб, названный в песне «полковником грибов». Это упоминание, однако, не следует напрямую отождествлять с современным строгим таксономическим пониманием вида, а скорее с давним культурным восприятием благородных лесных грибов.
Значение этого гриба в народной культуре Центрально-Восточной Европы подтверждается современными этнобиологическими исследованиями, в частности анализами традиций, проводившимися на украинско-румынском пограничье. Они указывают на исключительную сохранность знаний о белом грибе в коллективной памяти местных сообществ. Этот гриб также обладает сильной праздничной и обрядовой символикой, являясь традиционным элементом сочельнической трапезы как символ связи с природой.
Съедобность и безопасность
Белый гриб — широко ценимый съедобный гриб с мягким ореховым вкусом и выразительным лесным ароматом, который усиливается при сушке. Для употребления в пищу собирают здоровые, свежие плодовые тела. Употребление старых, перезрелых или пораженных плесенью плодовых тел может привести к неспецифическим отравлениям, вызванным процессами разложения тканей. Стандартной практикой подготовки к употреблению является термическая обработка гриба (варка, тушение, жарка), тогда как сушка служит методом его заготовки.
Традиции потребления имеют региональные различия. В Польше, а также в Центрально-Восточной Европе белый гриб является основным грибным сырьем, традиционно высушиваемым и маринуемым. В Италии, где он известен как porcino, он служит традиционным ингредиентом тушеных и жареных блюд. Во Франции под названием cèpe он широко используется в региональной гастрономии, тогда как в западноевропейских кухнях его популярность возросла под влиянием кулинарных традиций юга континента.
Местообитание и встречаемость
Белый гриб встречается в умеренной и бореальной зонах Северного полушария, произрастая в хвойных, лиственных и смешанных лесах. Будучи эктомикоризным грибом, он образует связи со многими видами лесных деревьев. Согласно таксономическо-экологическим исследованиям, к его основным микоризным партнерам относятся хвойные деревья, в том числе ель (Picea), сосна (Pinus) и пихта (Abies), а также лиственные деревья, прежде всего дуб (Quercus), бук (Fagus), береза (Betula) и каштан (Castanea).
Вид заселяет разнообразные типы лесных почв, чаще всего с кислой реакцией, включая песчаные, суглинистые и гумусовые субстраты, нередко в живом напочвенном покрове со мхами и черникой/брусникой. Встречается как на низменностях, так и в холмистых и горных районах.
Задокументированные в сводках диапазоны наблюдений плодовых тел в Центральной Европе охватывают в Польше период с июня по ноябрь (VI–XI), а в Чехии — с июня по октябрь (VI–X). Эти диапазоны определяют временные рамки фиксации плодовых тел в полевых условиях в зависимости от погодных условий, без необоснованного выделения месячных пиков или региональных сопоставлений частоты встречаемости.
Исследователь
Съедобность и кулинария
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Съедобность
- Съедобный — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Кулинарная оценка
- Очень вкусный
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Торговля
- Допущен к торговле
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Научные названия и таксономия
- Действующее научное название
Boletus edulis Bull.
- Прежние научные названия
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Границы таксона и ограничения определения
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Экология и распространение
Лабораторная диагностика
Dane ustrukturyzowane
Базидии
Каулоцистиды
Кожица шляпки
Химические реакции
- Амилоидная реакция
- Амилоидная реакция: отрицательный. [14]
Споры
- Цвет спор под микроскопом
- Цвет спор под микроскопом: жёлто-коричневой. [20]
- Капли внутри споры
- Капли внутри споры: присутствует. [21]
- Длина споры
- Длина споры: 16–19 µm. [20]
Длина споры: 12–18 µm. [17]
Длина споры: 12–19,5 µm. [14]
Длина споры: 14–18 µm. [24]
Длина споры: 13–16,5 µm. [21] - Отношение длины споры к ширине
- Отношение длины споры к ширине: 2,5–3,9. [14]
Отношение длины споры к ширине: 2,8–3,6. [21]
Отношение длины споры к ширине: 2,7–3,4. [20] - Форма споры
- Форма споры: веретеновидный. [24]
Форма споры: удлинённо-эллипсоидный. [17]
Форма споры: веретеновидный. [17]
Форма споры: веретеновидный. [21]
Форма споры: эллипсоидный. [21]
Форма споры: веретеновидный. [20] - Поверхность споры
- Поверхность споры: гладкий. [24]
Поверхность споры: гладкий. [17]
Поверхность споры: гладкий. [21]
Поверхность споры: гладкий. [20] - Толщина оболочки споры
- Толщина оболочки споры: толстостенный. [20]
Материал и методы исследований
- Результаты, приведённые в источниках — Длина концевых клеток пилеипеллиса
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Результаты, приведённые в источниках — Ширина концевых клеток пилеипеллиса
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Результаты, приведённые в источниках — Длина споры
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Результаты, приведённые в источниках — Отношение длины споры к ширине
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Результаты, приведённые в источниках — Ширина споры
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Проверка распространения — объём и ограничения
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Подготовка материала для микроскопии
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Объём проверки
Перед завершением запись требует дополнения или проверки.
- Поиск регионов произрастания требует уточнения.
- Взаимосвязи прежних данных требуют повторной проверки.
- Новые источники требуют учёта сведений, обнаруженных в ходе обзора.
Правовая основа и объём оценки
Важнейшие вещества и их действие
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Местообитание и встречаемость
Местообитание, регион и сезон
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Источники |
|---|---|---|---|
| Чехия | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Польша | Нижняя Силезия — диапазон, названный источником | VI–XI |
|
Источники
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis