
Essbar

Für den Handel zugelassen
Lege deinen Standort fest, um Daten für deine Region zu sehen.


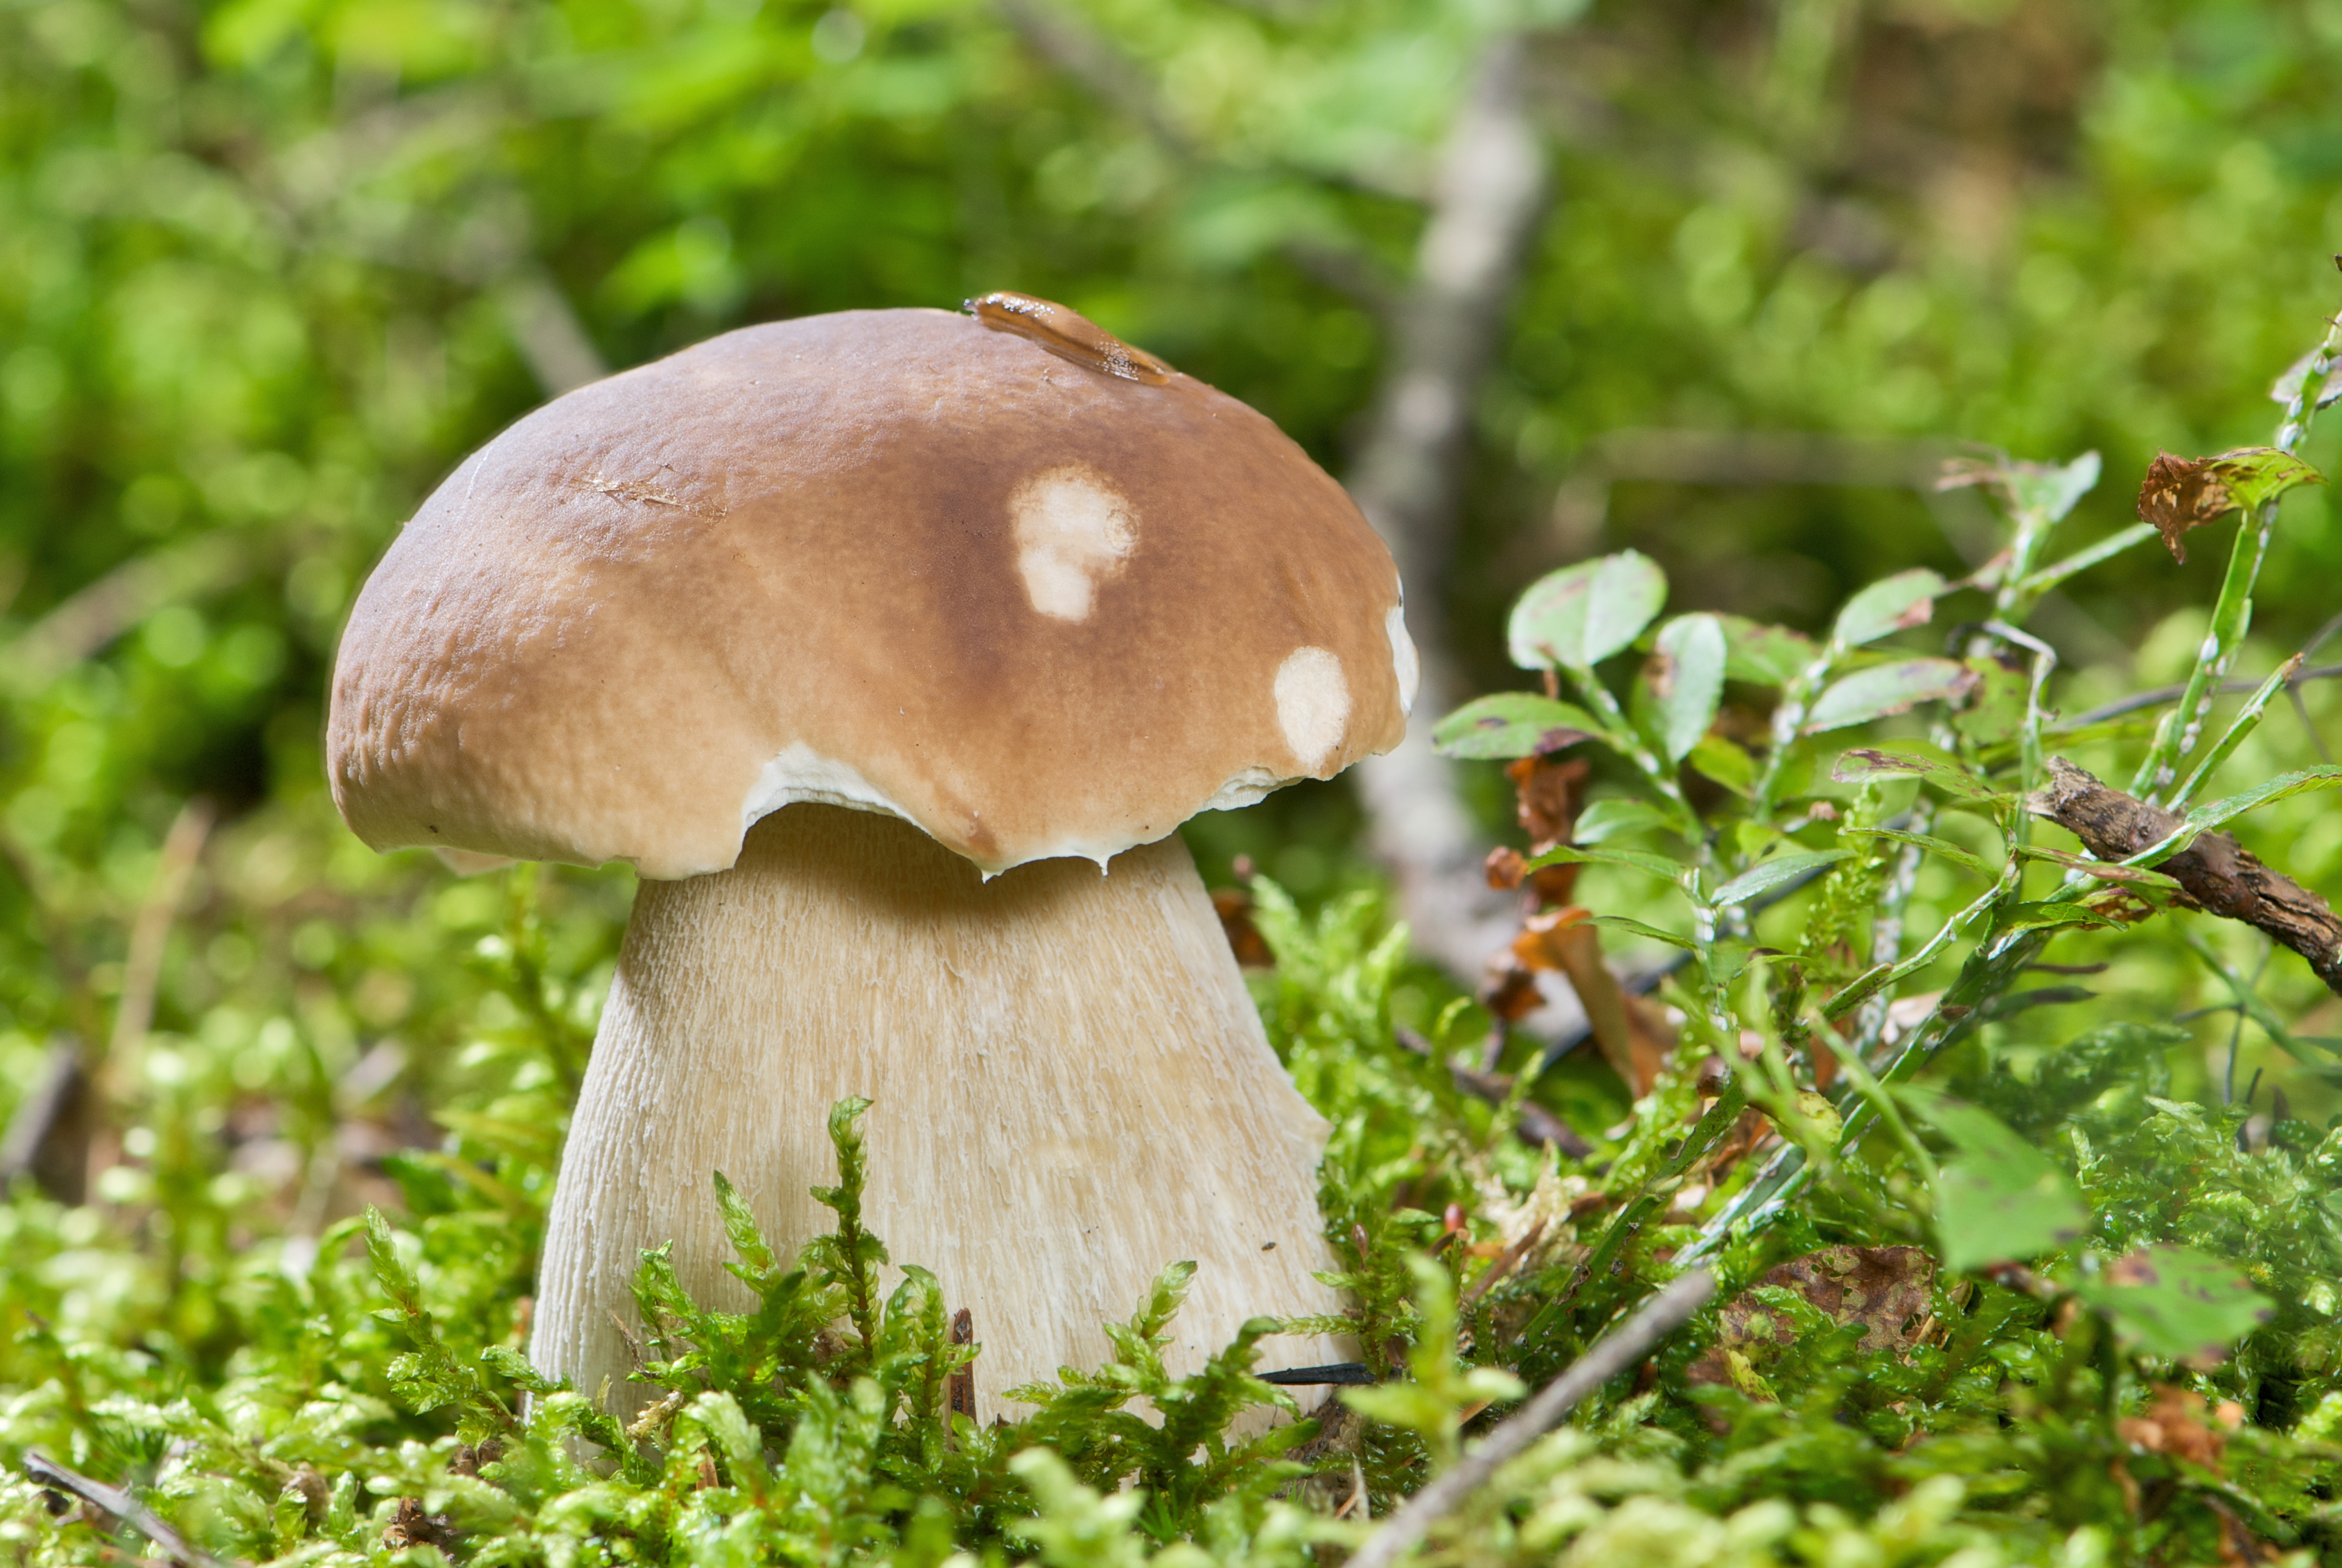


Der Gemeine Steinpilz (Boletus edulis) ist ein geschätzter Speisepilz, der in Nadel-, Laub- und Mischwäldern auf sauren Böden vorkommt. Er bildet Fruchtkörper mit einem fleischigen, braunen Hut und einem Stiel, der mit einem feinen, weißlichen oder hellbraunen Netzmuster bedeckt ist. Die Röhrenporen sind bei jungen Pilzen weiß und verändern bei reifen ihre Farbe zu gelb bis gelboliv. Das weiße Fleisch verändert seine Farbe nach dem Anschneiden nicht. Diese Art bildet Mykorrhiza mit verschiedenen Bäumen, u. a. Fichte, Tanne, Kiefer, Buche und Birke.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut, Stiel.
Hut
- Hutform
- bei jungen Fruchtkörpern: Hutform: halbkugelig.
bei reifen Fruchtkörpern: Hutform: gewölbt.
bei reifen Fruchtkörpern: Hutform: flach. - Oberflächenrelief des Hutes
- Oberflächenrelief des Hutes: glatt.
Oberflächenrelief des Hutes: runzelig. - Hutbedeckung
- Hutbedeckung: kahl.
- Glanz der Hutoberfläche
- bei Nässe: Glanz der Hutoberfläche: glänzend.
- Klebrigkeit und Schleimigkeit des Huts
- bei Nässe: Klebrigkeit und Schleimigkeit des Huts: klebrig.
bei Nässe: Klebrigkeit und Schleimigkeit des Huts: schleimig. - Hutfarbe
- Hutfarbe: beige.
Hutfarbe: braun.
Hutfarbe: dunkelbraun.
bei reifen Fruchtkörpern: Hutfarbe: dunkelbraun.
bei jungen Fruchtkörpern: Hutfarbe: hellbraun.
Hutfarbe: hellbraun.
Hutfarbe: hellocker.
Hutfarbe: ockerbraun.
bei reifen Fruchtkörpern: Hutfarbe: rotbraun.
Hutfarbe: weiß (am Hutrand). - Hutdurchmesser
- Der Hutdurchmesser beträgt 50–300 mm.
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Röhren.
Röhren am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: am Stiel angewachsen (Röhren).
- Profil des Hymenophors am Stiel
- Profil des Hymenophors am Stiel: am Stiel ausgebuchtet (Röhren).
- Ablösbarkeit des Hymenophors vom Hut
- Ablösbarkeit des Hymenophors vom Hut: leicht ablösbar (Röhren).
- Porenform
- bei jungen Fruchtkörpern: Porenform: rund.
bei reifen Fruchtkörpern: Porenform: kantig. - Porenfarbe nach Verletzung
- Porenfarbe nach Verletzung: keine Farbänderung.
Porenfarbe nach Verletzung: keine Farbänderung. - Farbe der Röhren bei Verletzung
- Farbe der Röhren bei Verletzung: keine Farbänderung.
- Natürliche Porenfarbe
- bei jungen Fruchtkörpern: Natürliche Porenfarbe: weiß.
bei reifen Fruchtkörpern: Natürliche Porenfarbe: gelb.
bei reifen Fruchtkörpern: Natürliche Porenfarbe: gelboliv.
bei reifen Fruchtkörpern: Natürliche Porenfarbe: olivgrüngelb.
bei jungen Fruchtkörpern: Natürliche Porenfarbe: weißlich.
bei reifen Fruchtkörpern: Natürliche Porenfarbe: gelbgrün. - Natürliche Röhrenfarbe
- bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: cremefarben.
bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: blassgelb.
bei jungen Fruchtkörpern: Natürliche Röhrenfarbe: weiß.
bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: gelboliv.
bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: olivgrüngelb.
bei jungen Fruchtkörpern: Natürliche Röhrenfarbe: weißlich.
bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: gelb.
bei reifen Fruchtkörpern: Natürliche Röhrenfarbe: gelbgrün.
Stiel und Basis
- Stielform
- bei jungen Fruchtkörpern: Stielform: tonnenförmig.
bei reifen Fruchtkörpern: Stielform: keulenförmig.
Stielform: zylindrisch.
Stielform: keulenförmig.
Stielform: zur Basis hin verjüngt. - Stielbasis
- Stielbasis: keulenförmig.
Stielbasis: verdickt. - Stielfarbe
- Stielfarbe: weißlich.
Stielfarbe: hellbraun. - Relief der Stieloberfläche
- im oberen Teil des Stiels: Relief der Stieloberfläche: netzartig.
- Stiellänge
- Stiellänge: 20–300 mm.
- Stieldurchmesser
- Stieldurchmesser: 15–120 mm.
- Farbe der Stielnetzzeichnung
- im oberen Teil des Stiels: Farbe der Stielnetzzeichnung: weißlich.
im oberen Teil des Stiels: Farbe der Stielnetzzeichnung: hellbraun.
im oberen Teil des Stiels: Farbe der Stielnetzzeichnung: weiß.
Fleisch
- Fleischfarbe
- Fleischfarbe: weiß.
Fleischfarbe: rotbraun (Hutfleisch, unter der Haut).
Fleischfarbe: rosafarben getönt (Hutfleisch, unter der Haut).
Fleischfarbe: bräunlich (Fleisch an der Stielbasis). - Festigkeit des Fleisches
- bei jungen Fruchtkörpern: Festigkeit des Fleisches: fest.
bei reifen Fruchtkörpern: Festigkeit des Fleisches: weich. - Geschmack des Fleisches
- Geschmack des Fleisches: schwach.
- Elastizität des Fleisches
- bei jungen Fruchtkörpern: Elastizität des Fleisches: elastisch.
- Fleischstruktur
- bei reifen Fruchtkörpern: Fleischstruktur: watteartig.
bei alten Fruchtkörpern: Fleischstruktur: schwammig. - Fleischfarbe nach Verletzung
- Fleischfarbe nach Verletzung: keine Farbänderung.
Fleischfarbe nach Verletzung: keine Farbänderung.
Fleischfarbe nach Verletzung: keine Farbänderung. - Fleischgeruch
- Fleischgeruch: pilzartig, schwach.
Fleischgeruch: schwach. - Geschmacksnote des Fleisches
- Geschmacksnote des Fleisches: nussartig.
Wo und wann wächst er
- Lebensraum
- Lebensraum: Nadelwald.
Lebensraum: Laubwald.
Lebensraum: Mischwald. - Substrat
- Substrat: Boden.
- Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln.
Wuchsweise der Fruchtkörper: in Gruppen. - Vorkommenshäufigkeit
- Vorkommenshäufigkeit: häufig.
- Fruchtzeit
- Die Fruchtkörper erscheinen von Juni bis November.
- Verbreitungsgebiet
Essbarkeit und Küche
- Speisewert
- Essbar
- Kulinarische Bewertung
- Sehr schmackhaft
Recht
Vorschriften für Standort: Polen
- Schutzstatus
- Boletus edulis unterliegt in Polen keinem gesetzlichen Artenschutz.
- Handel
- Für den Handel zugelassen
Verwechslungsmöglichkeiten
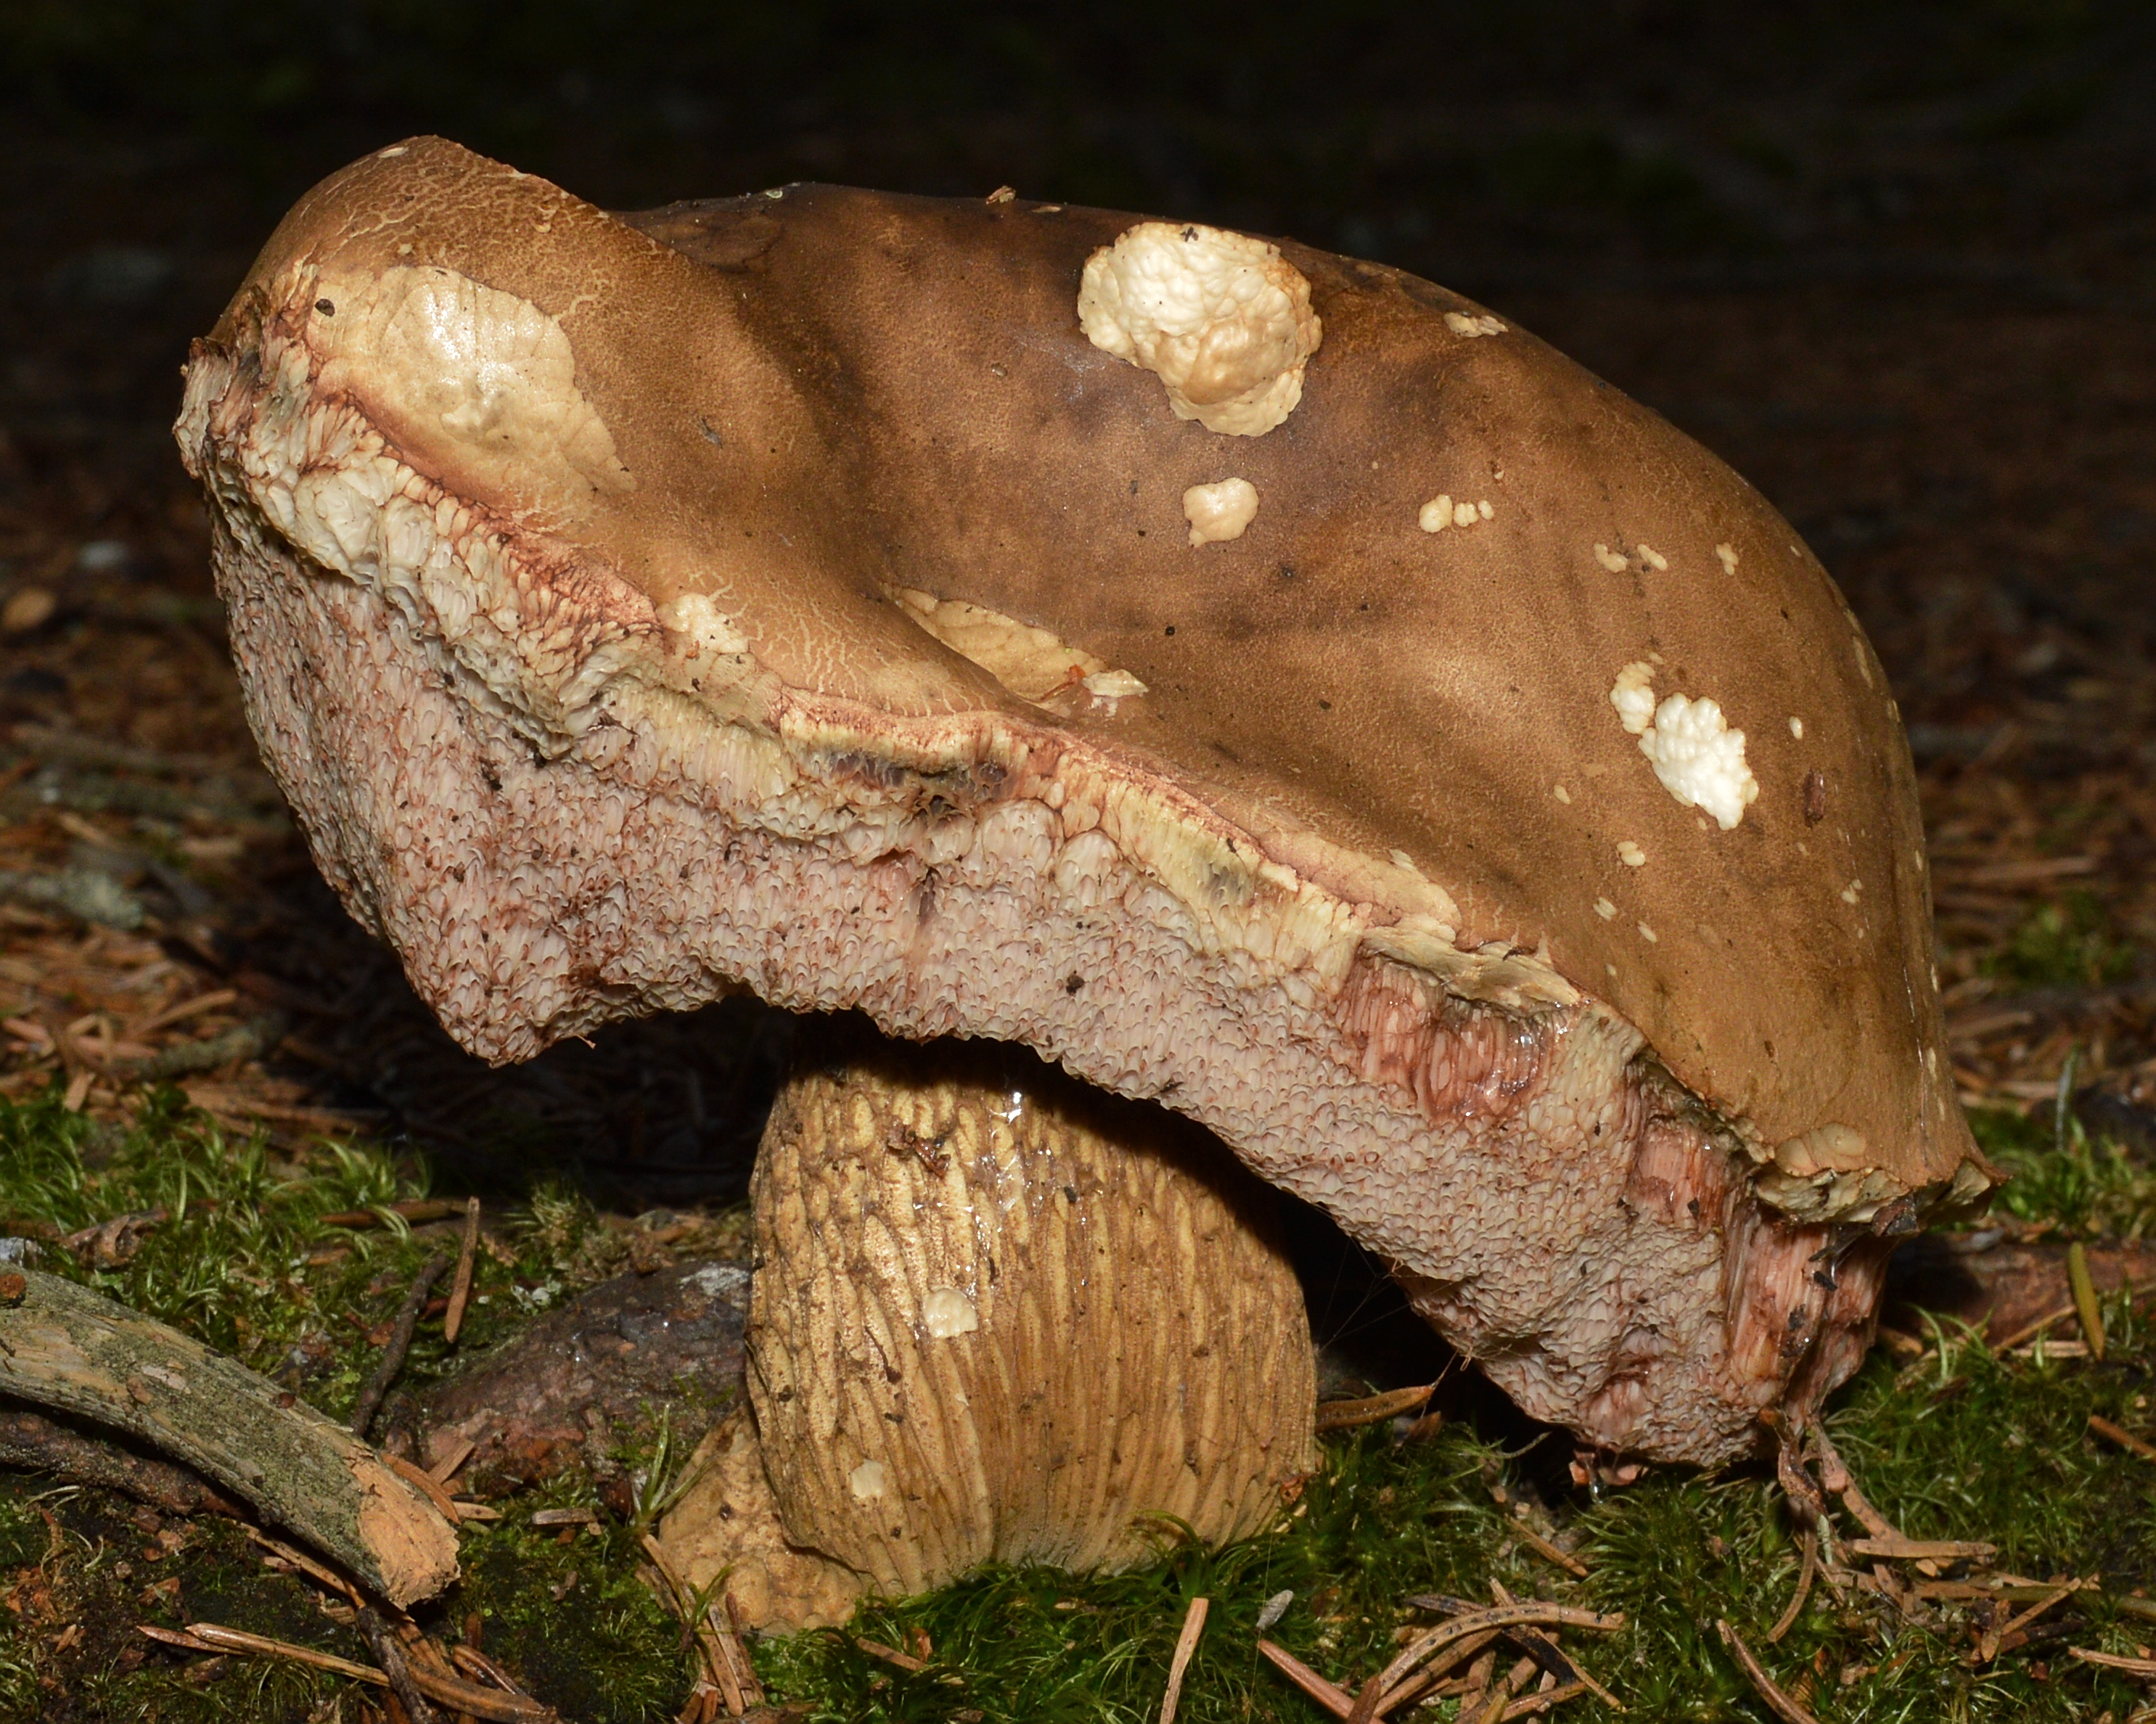
Tylopilus felleus
Wichtigste Unterschiede
Der Gemeine Gallenröhrling (Tylopilus felleus) besitzt bei jungen Exemplaren weißliche Poren, weshalb er mitunter mit dem Gemeinen Steinpilz verwechselt wird. Mit zunehmender Reife werden seine Poren jedoch schmutzigrosa, das Netz am Stiel ist dick, dunkel und erhaben, und der Hut bleibt matt und samtig. Das Fleisch des Gallenröhrlings zeichnet sich durch eine intensive Bitterkeit aus, die weder durch Kochen noch durch Trocknen vergeht, wodurch schon ein einzelner Fruchtkörper den Geschmack des gesamten Gerichts verdirbt.
Der Gemeine Steinpilz (Boletus edulis) ähnelt einem jungen Gallenröhrling im Habitus und im braunen Hut. Er unterscheidet sich jedoch durch einen helleren, anfangs weißen Stiel, der von einem feinen, hellen Netz überzogen ist (das vor allem im oberen Bereich sichtbar ist). Zudem verändern die Röhren und Poren des Gemeinen Steinpilzes im Alter ihre Farbe von Weiß zu Gelbgrün und Olivgrün, während sie beim Gallenröhrling rosa werden.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Fotoquelle · Public domainBoletus reticulatus
Wichtigste Unterschiede
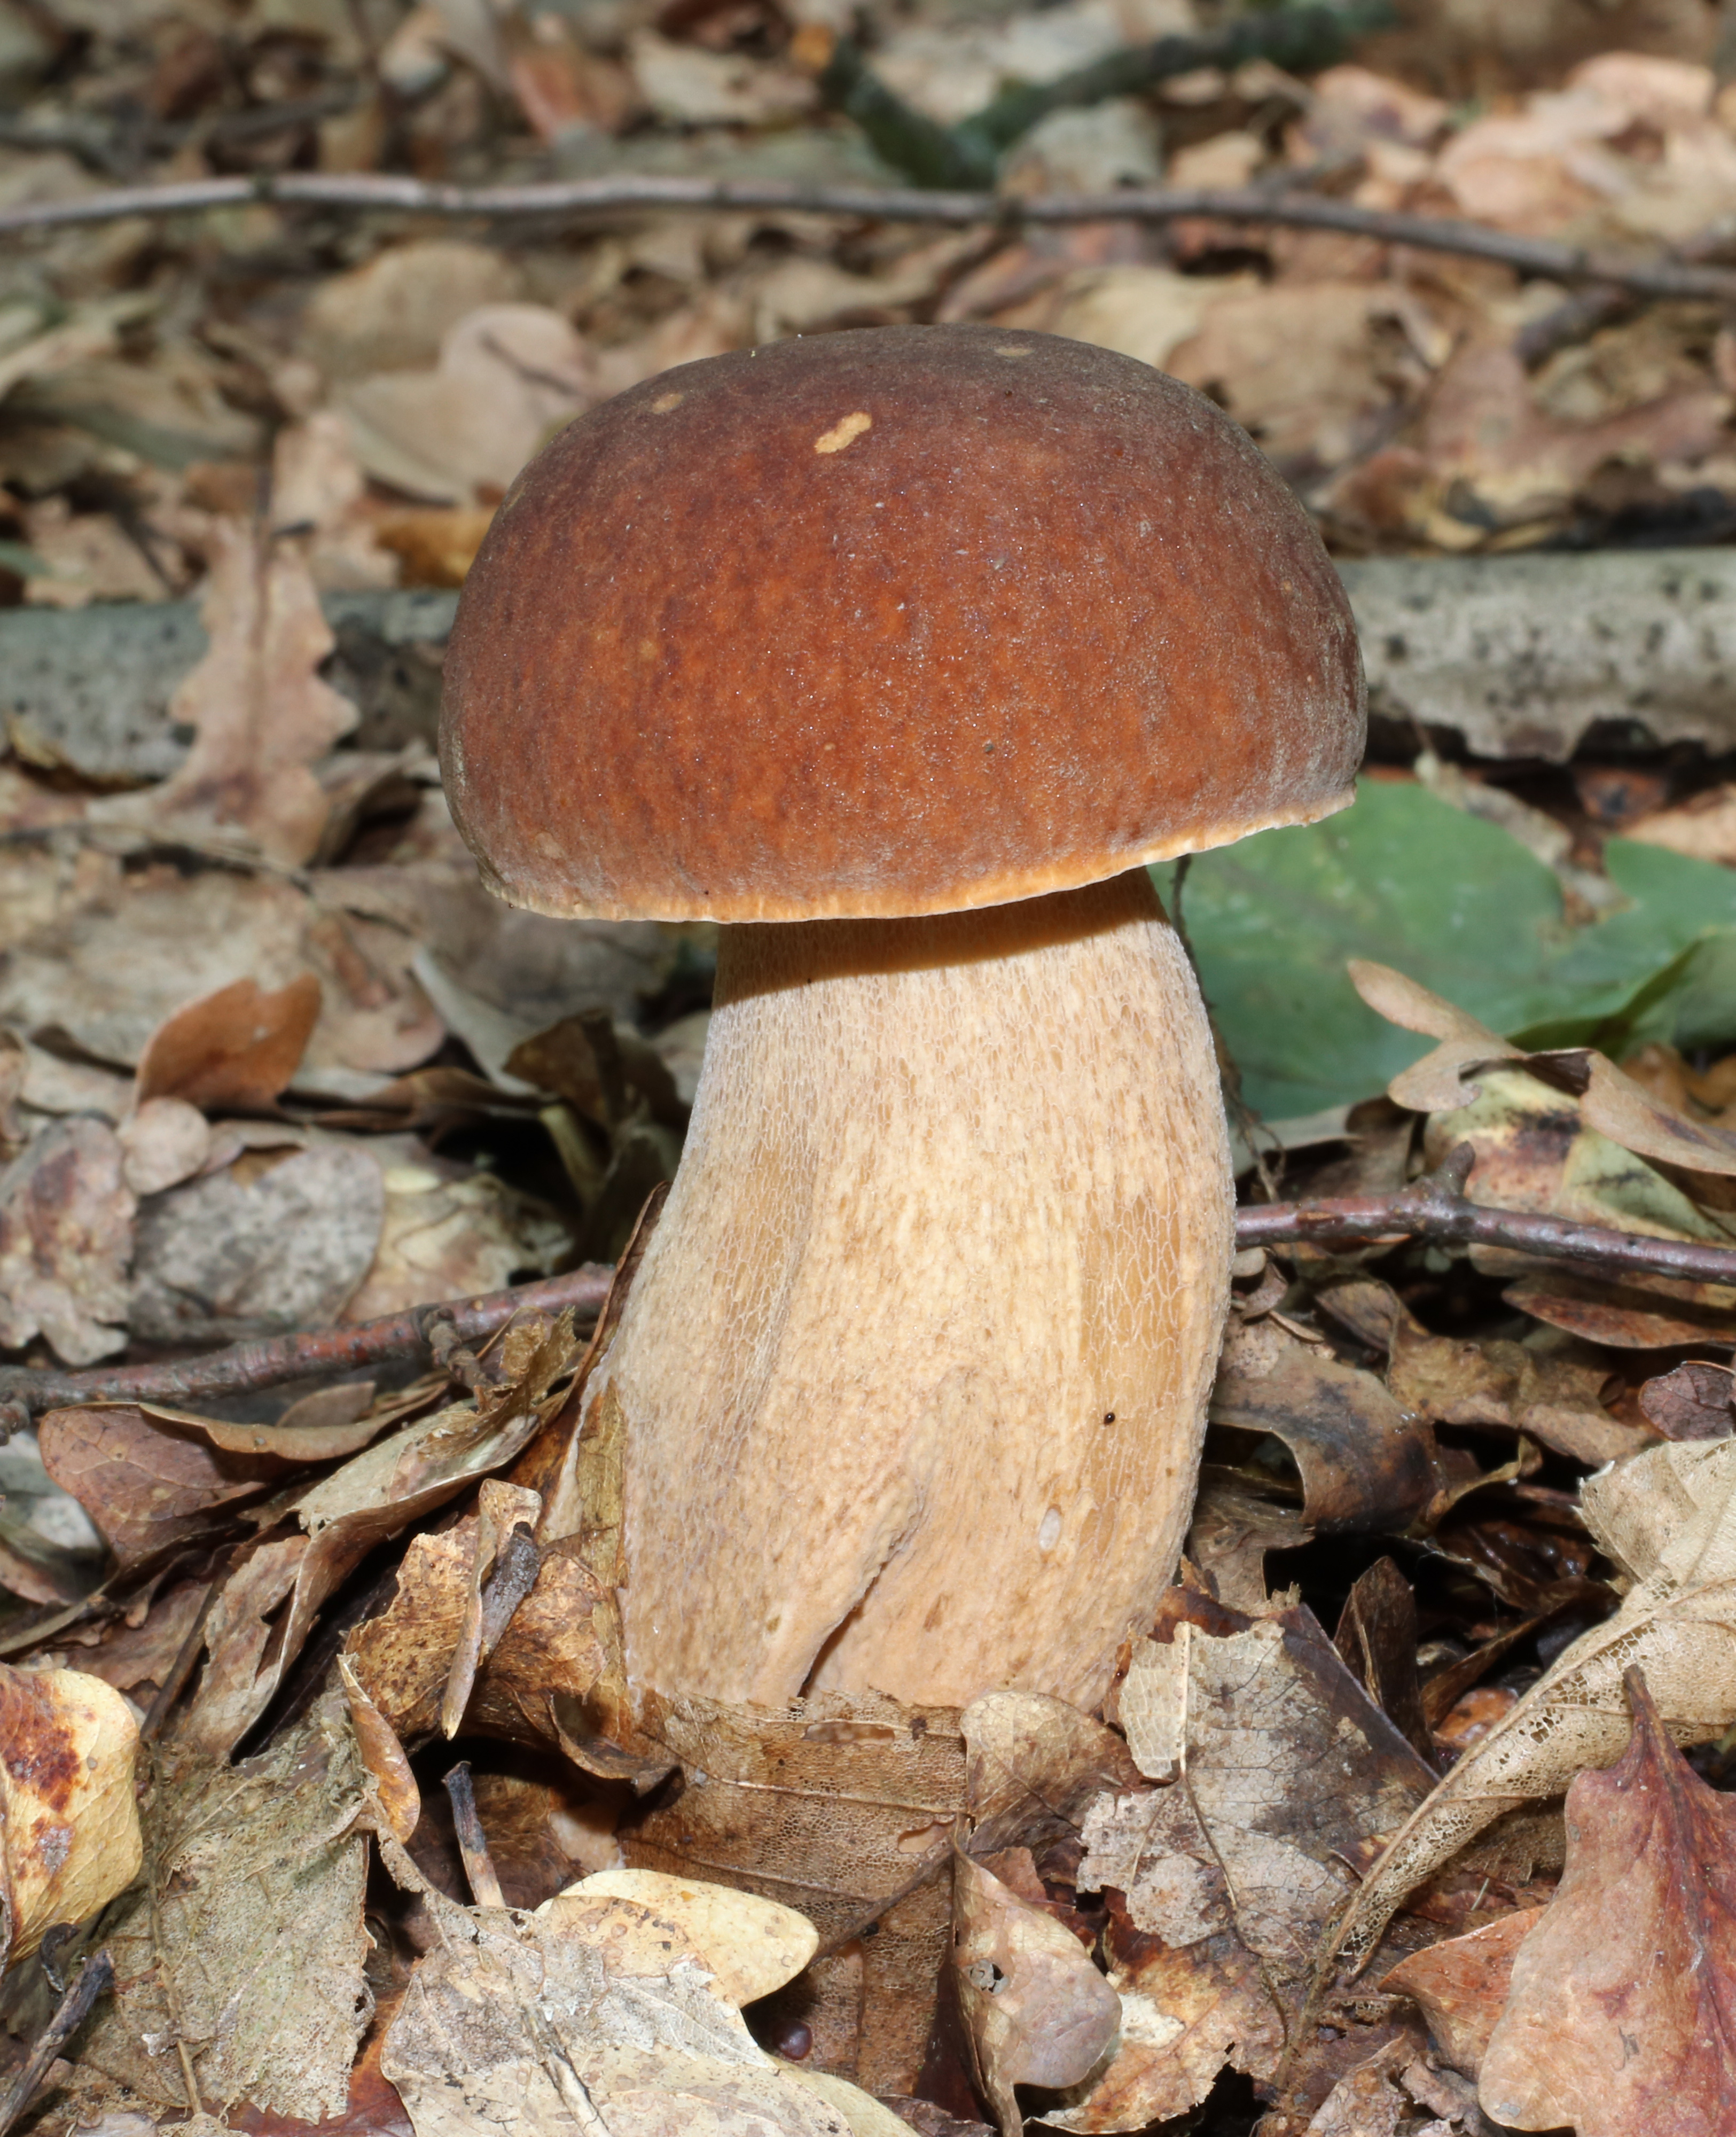
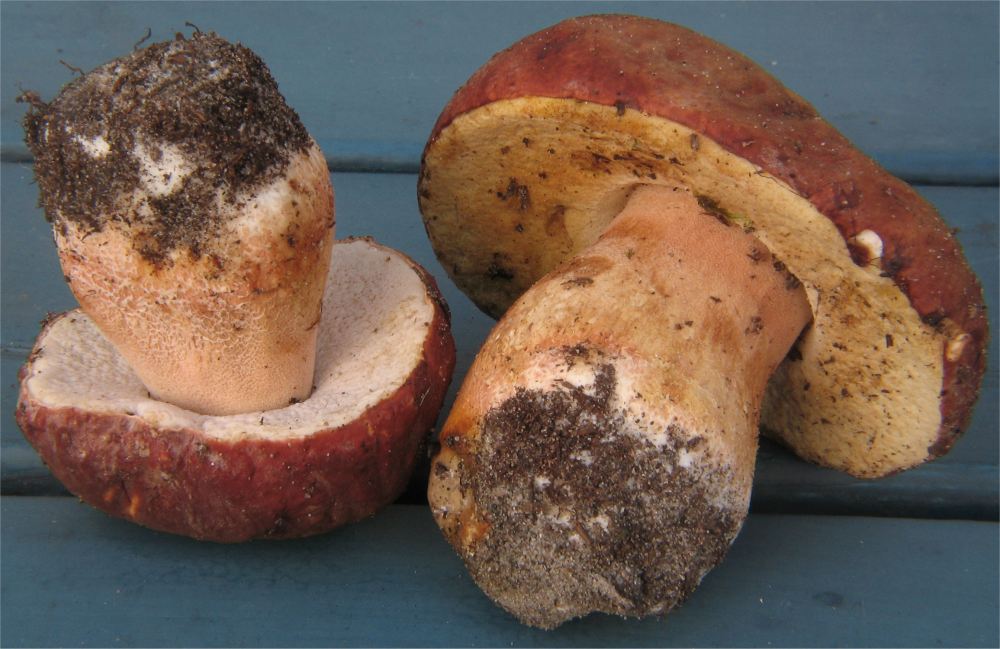
Der Sommer-Steinpilz (Boletus reticulatus) zeichnet sich durch einen Hut mit matter, samtartiger oder lange bereifter Oberfläche aus, die bei Trockenheit oft in kleine Felder aufreißt, sowie durch ein deutliches Netz, das oft fast den gesamten Stiel bedeckt. Er kommt hauptsächlich unter Buchen und Eichen vor und erscheint in der Regel früher in der Saison als der Gemeine Steinpilz. Aufgrund der Variabilität der Oberflächenmerkmale und der Ausdehnung des Netzes bei beiden Arten erlaubt die bloße Ausdehnung der Maschen am Stiel nicht immer deren eindeutige Unterscheidung.
Der Gemeine Steinpilz (Boletus edulis) hat gewöhnlich eine glattere Hutoberfläche, die bei feuchtem Wetter klebrig und schmierig wird, und an seinem Rand ist oft ein schmaler, hellerer Saum sichtbar. Das Netz am Stiel des Gemeinen Steinpilzes ist im Allgemeinen feiner und hauptsächlich auf seinen oberen Teil beschränkt. Beim Sommer-Steinpilz ist der Hut gewöhnlich trocken, samtartig und neigt zum Aufreißen, und das Netz am Stiel ist heller und ausgeprägter, obwohl die bloße Ausdehnung des Netzes kein sicheres entscheidendes Kriterium darstellt.
Boletus pinophilus
Wichtigste Unterschiede
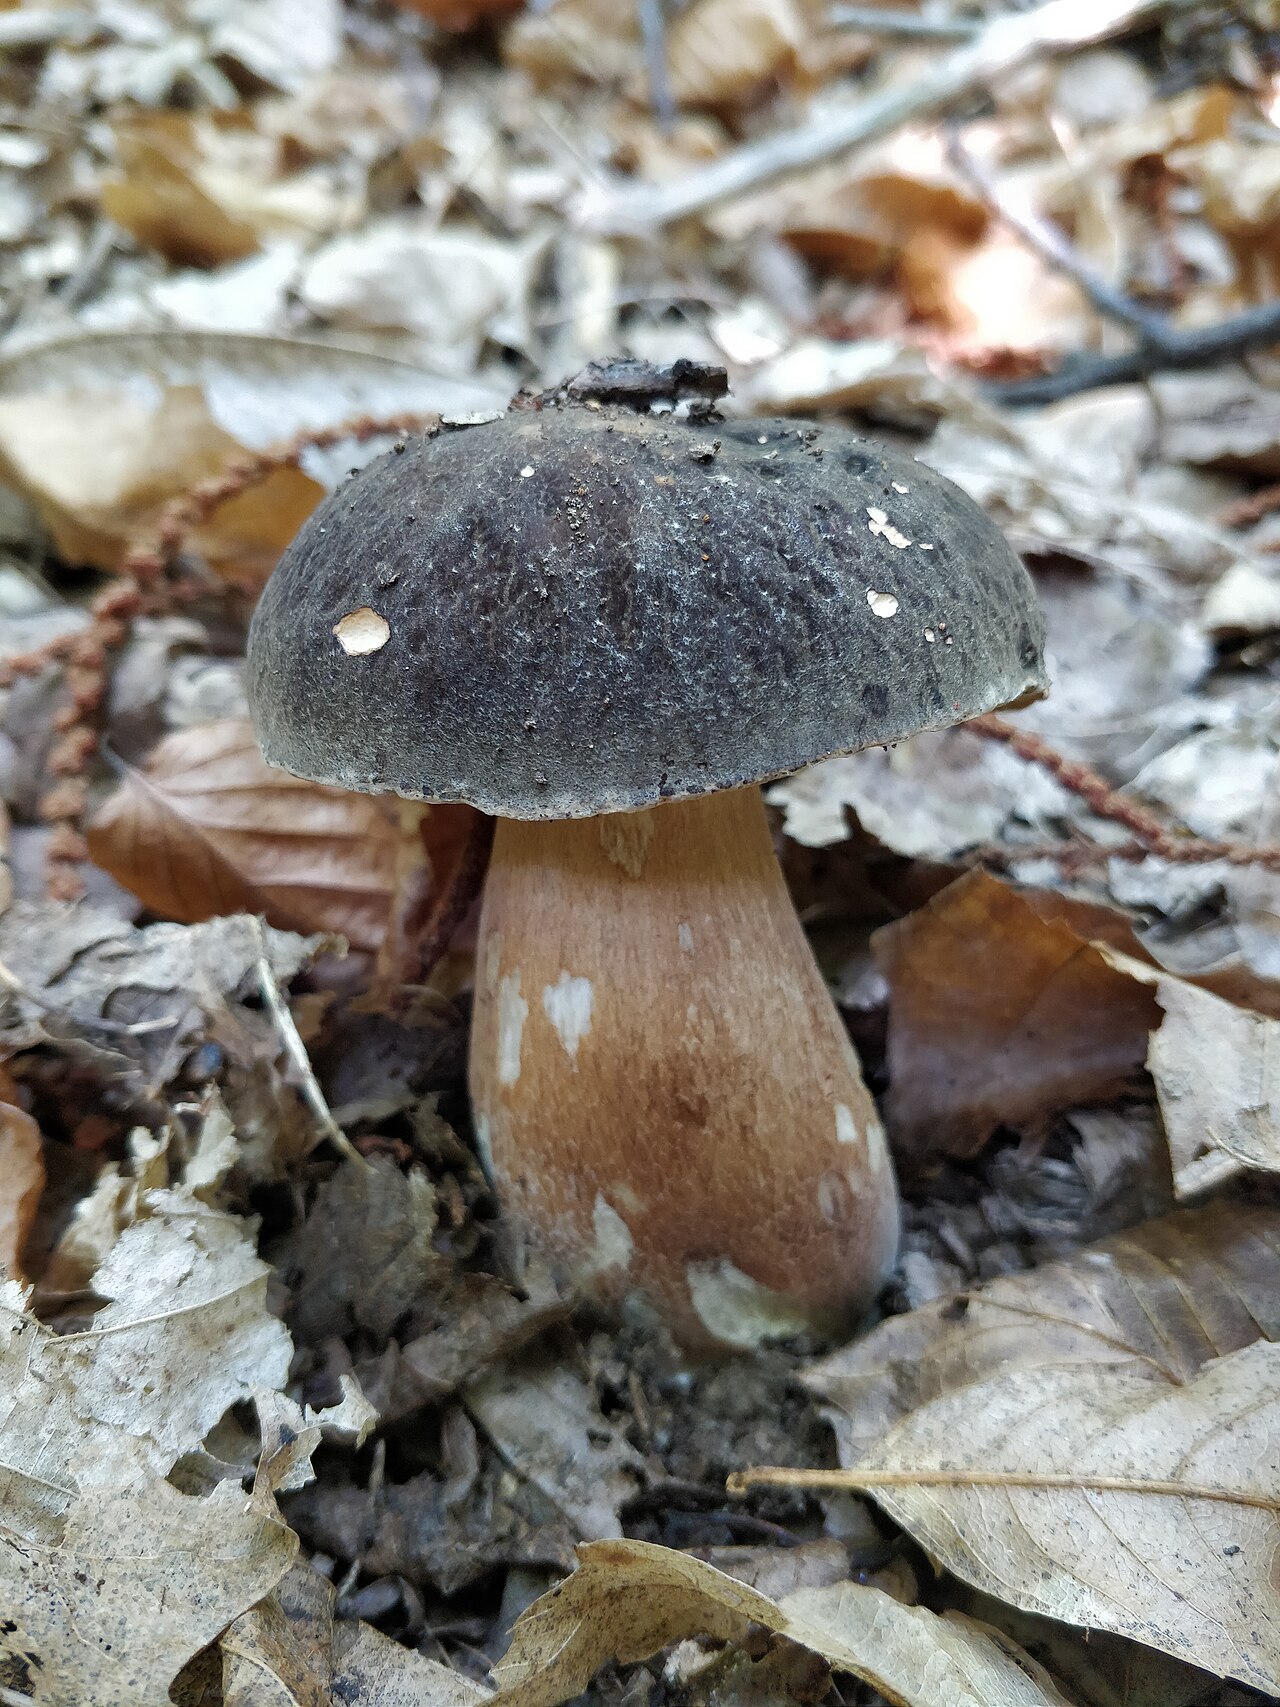
Der Kiefern-Steinpilz (Boletus pinophilus) zeichnet sich durch einen dunklen, rotbraunen oder fast schwarzbraunen Hut aus und wächst hauptsächlich in Verbindung mit Kiefern. Im mikroskopischen Bau zeichnet er sich durch eine dicke, gelatinisierte Huthaut sowie Endelemente mit einer Breite von bis zu 27 µm aus, die ein rotbraunes, wandständiges inkrustierendes Pigment enthalten, das sich in Kaliumhydroxid (KOH) löst.
Der Gemeine Steinpilz (Boletus edulis) hat mitunter einen Hut in Tönen von Hellbraun bis Dunkelbraun, manchmal mit einem gelblichen oder rötlichen Ton, doch seine Oberfläche ist kahl, fettig, und das Netz am Stiel ist gewöhnlich fein und auf den oberen Teil beschränkt. Mikroskopisch sind die Endelemente der Huthaut von B. edulis 4–19 µm breit, und der Farbstoff kommt im Zellinneren vor. Das Vorhandensein eines rötlichen Farbtons sowie die Nachbarschaft von Kiefern sind keine exklusiven Merkmale für B. pinophilus, da B. edulis ebenfalls in Kiefernwäldern auf nährstoffarmen, sauren Sandböden wächst.
Boletus aereus
Wichtigste Unterschiede
Der Gemeine Steinpilz (Boletus edulis) unterscheidet sich durch eine glatte, bei feuchten Bedingungen fettig anzufühlende Huthaut, eine breitere Palette hellerer und dunklerer Brauntöne sowie ein weißliches Netzmuster, das gewöhnlich in der oberen Stielhälfte vorhanden ist (seltener weiter nach unten reicht). Mikroskopisch sind die Endelemente der Huthaut bei B. edulis 4–19 µm breit, während bei B. aereus der Hut trocken, fein filzig und sehr dunkel ist, obwohl sich einzelne Färbungsmerkmale überlappen können.
Der Schwarzhütige Steinpilz (Boletus aereus) kommt in wärmeliebenden Laubwäldern vor, hauptsächlich in Eichenwäldern, auch auf kalkhaltigen Böden, seltener unter Edelkastanien. Er hat einen sehr dunklen, trockenen, zart behaarten Hut. Unter dem Mikroskop erreichen die Endelemente seiner Huthaut eine Breite von bis zu 11 µm und enthalten feinkörniges intrazelluläres Pigment.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Fotoquelle · CC BY 3.0Caloboletus calopus
Wichtigste Unterschiede
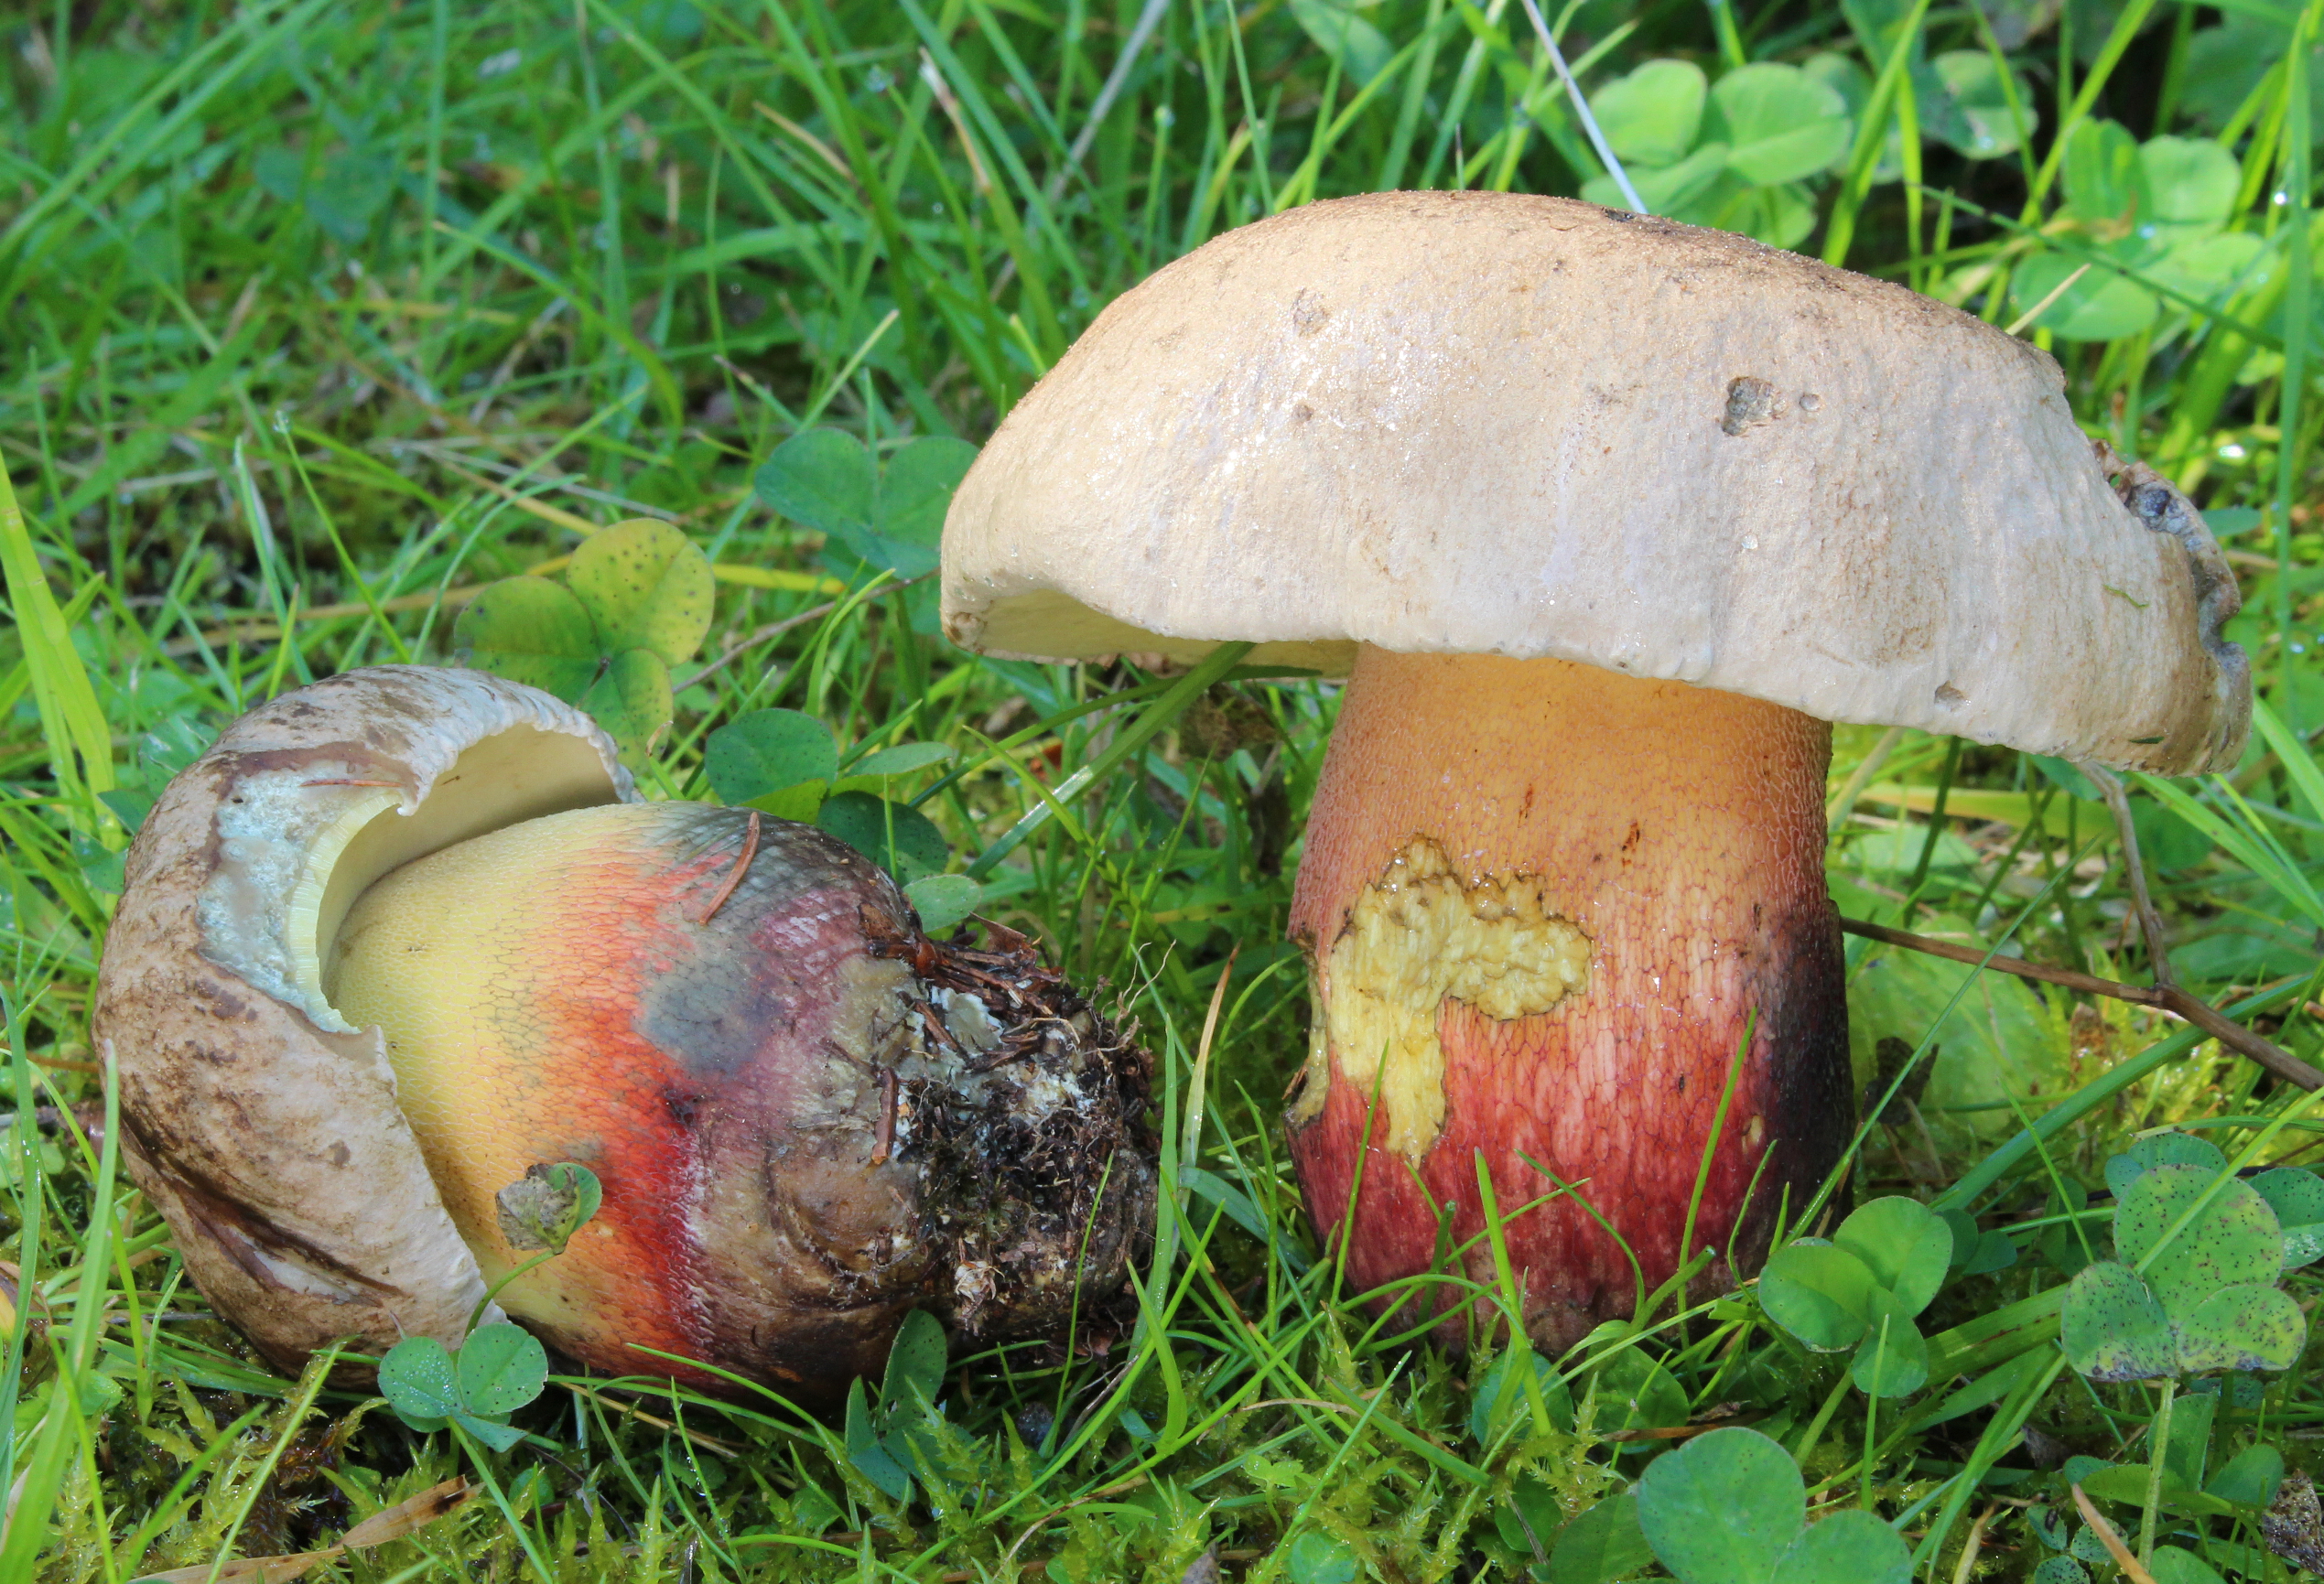
Eine Verwechslung mit dem Gemeinen Steinpilz (Boletus edulis) ist im Gelände vor allem bei einem flüchtigen Blick von oben auf junge Fruchtkörper möglich. Der Gemeine Steinpilz unterscheidet sich durch seinen braunen Hut, weiße bis gelbgrüne Röhren, die auf Druck nicht blauen, einen hellen Stiel ohne jede Spur von leuchtendem Rot sowie einen milden, angenehmen Geschmack.
Imleria badia
Wichtigste Unterschiede
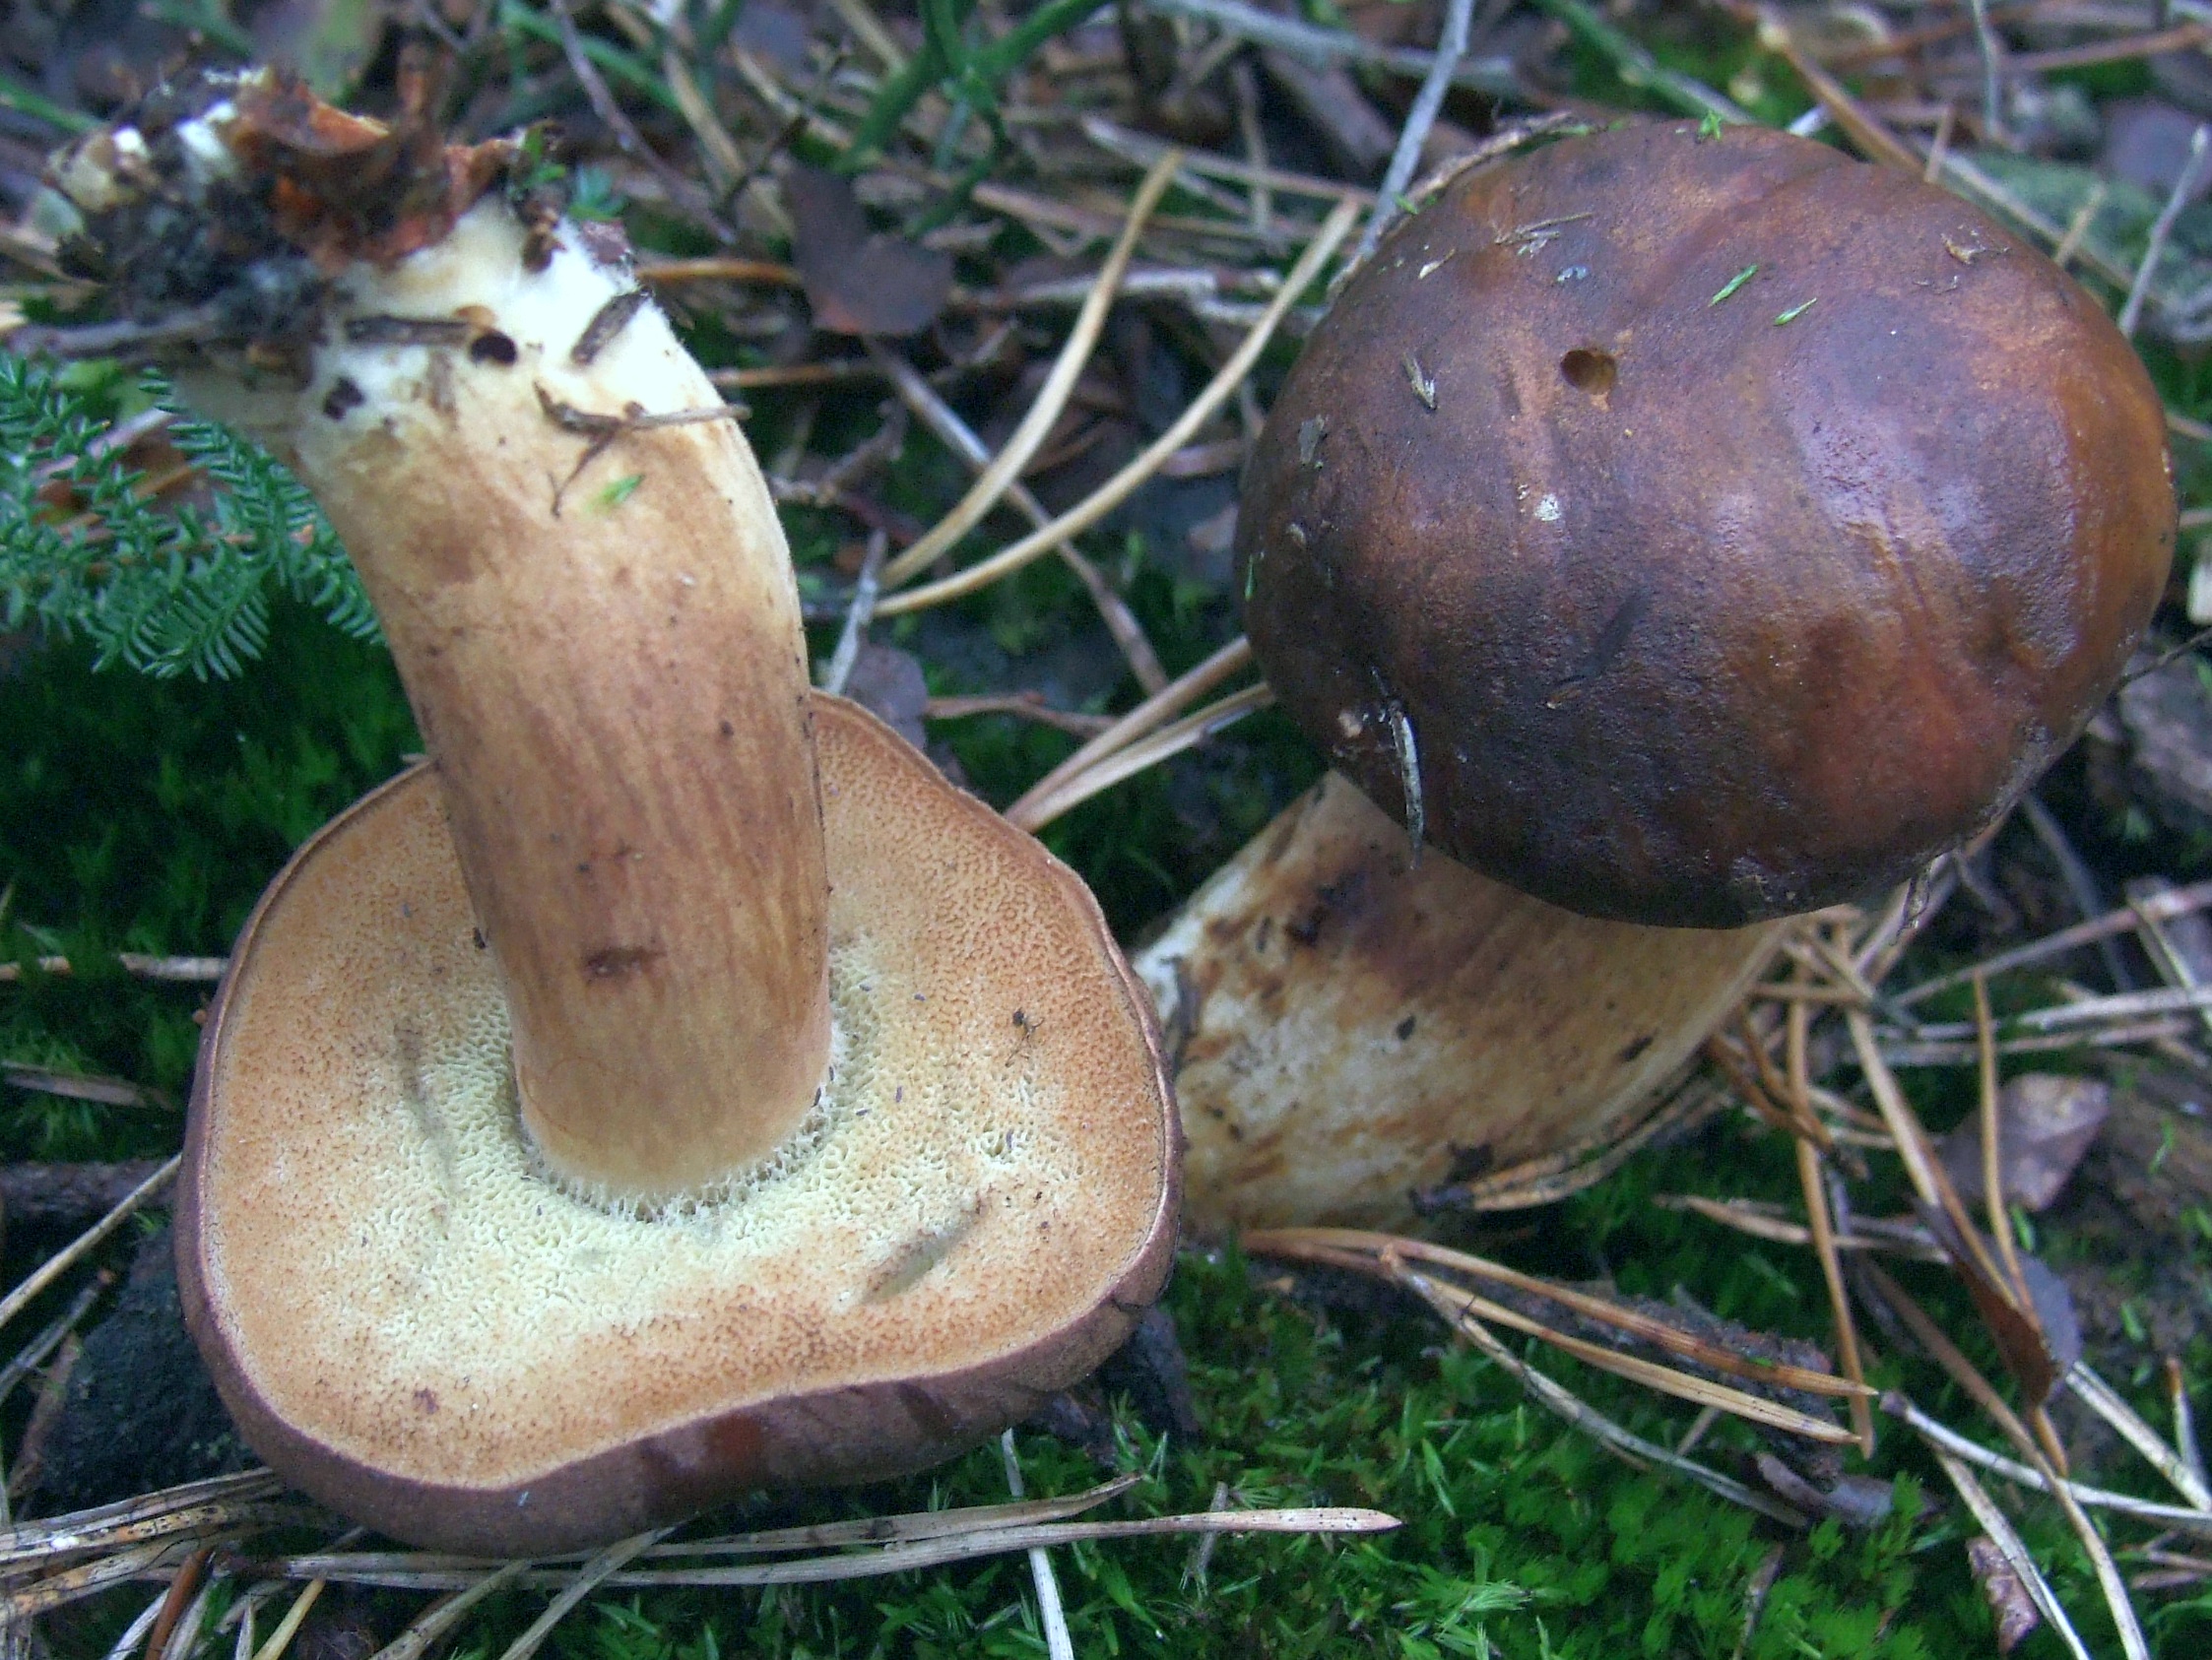
Die Marone (Imleria badia) und der Gemeine Steinpilz (Boletus edulis) sind beliebte Speisepilze. Der Gemeine Steinpilz hat einen Stiel mit hellem Netz sowie anfangs weiße, mit dem Alter gelbe bis gelbolive Poren, die auf Druck ihre Farbe nicht verändern. Sein Fleisch bleibt nach dem Durchschneiden weiß. Die Marone hat einen bräunlichen, netzlosen Stiel, und die Poren blauen auf Druck deutlich. Das Fleisch der Marone bläut nach dem Durchschneiden, insbesondere im Hut und über den Röhren.
FAQ
Blaut der Gemeine Steinpilz nach dem Anschneiden?
Nein. Das Fleisch des Gemeinen Steinpilzes verändert seine Farbe nach dem Anschneiden nicht – es blaut nicht und dunkelt bei Luftkontakt nicht nach. Das Fehlen einer Farbveränderung an der Schnittstelle ist ein wichtiges diagnostisches Merkmal.
Kann der Hut des Steinpilzes schlüpfrig sein?
Ja. Bei feuchtem Wetter ist der Hut mitunter schlüpfrig, klebrig oder schleimig und glänzend, und bei jungen Fruchtkörpern leicht klebrig. Die eigentliche Hutoberfläche ist mitunter glatt oder runzelig.
Hat jeder Gemeine Steinpilz einen dunkelbraunen Hut?
Nein. Die Hutfarbe ist variabel: von hellbraun über nussbraun bis dunkelbraun und rotbraun. In der weiten Fassung der Art werden auch Formen mit noch hellerer Färbung berücksichtigt.
Sind „prawdziwek“ und Gemeiner Steinpilz dasselbe?
„Prawdziwek“ ist der umgangssprachliche Name des Gemeinen Steinpilzes, wird jedoch im allgemeinen Sprachgebrauch mitunter auch auf mehrere ähnliche Arten von Steinpilzen bezogen, die von Pilzsammlern gesammelt werden.
Warum hat der Steinpilz mal weiße und mal gelbolive Poren?
Das hängt von der Reife des Fruchtkörpers ab. Bei jungen Pilzen sind die Poren weiß, während sie bei reifen gelb bis gelboliv werden. Mit dem Alter werden die kleinen, rundlichen Poren zudem eckig.
Verstärkt das Trocknen den Geruch des Steinpilzes?
Ja. Frische Fruchtkörper haben einen schwachen Pilzgeruch, während das Trocknen das Aroma deutlich verstärkt. Getrockneter Steinpilz riecht wesentlich stärker und ist eine traditionelle Zutat polnischer Suppen sowie Piroggen.
Wie groß kann der Hut des Gemeinen Steinpilzes sein?
In polnischen Quellen gibt Snowarski einen Durchmesser von 60–250 mm an, der tschechische Tejkal 50–250 mm. Die Ausarbeitungen von Muñoz und Korhonen verzeichnen für den Gemeinen Steinpilz wiederum Hüte, die bis zu 300 mm (30 cm) erreichen.
Wie unterscheidet man den Gemeinen Steinpilz vom Gemeinen Gallenröhrling?
Der Gallenröhrling hat ein dunkles, grobes Netz am Stiel und reife Poren in einem Rosaton. Beim Steinpilz ist das Netz fein, weißlich oder hellbraun, und die reifen Poren sind gelb bis gelboliv.
Wann kann man den Gemeinen Steinpilz finden?
Das hängt von der regionalen Betrachtung ab. In polnischen Quellen wird die Vorkommenszeit als Sommer und Herbst angegeben, während der Pilz in Tschechien in einem wiederkehrenden Zeitraum von Juni bis Oktober fruchtet.
Unter welchen Bäumen wächst der Gemeine Steinpilz?
Der Gemeine Steinpilz wächst in Nadel-, Laub- und Mischwäldern. Er bildet Mykorrhiza-Verbindungen mit verschiedenen Bäumen: Die Quellen nennen hier Fichte, Tanne, Kiefer, Buche sowie Birke.
Liebhaber
Hutunterseite
- Röhrenlänge
- Röhrenlänge: 5–30 mm.
Namen und Geschichte
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Heimische Beobachtungen
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Nach 2–24 Stunden den Hut anheben und den Niederschlag betrachten.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: braun. Sporenpulverfarbe: grün.
- Farbton des Sporenpulvers
- Farbton des Sporenpulvers: dunkelolivenbraun. Farbton des Sporenpulvers: braunoliv.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenform
- Sporenform: spindelförmig. Sporenform: langgestreckt ellipsoid. Sporenform: spindelförmig. Sporenform: spindelförmig. Sporenform: ellipsoid.
- Sporenoberfläche
- Sporenoberfläche: glatt. Sporenoberfläche: glatt. Sporenoberfläche: glatt.
- Sporenmaße
- Länge 12–19,5 µm, Breite 4–7 µm.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Ökologie und Verbreitung
- Bodenreaktion
- Bodenreaktion: sauer.
- Kalkgehalt des Bodens
- Kalkgehalt des Bodens: nicht kalkhaltig.
- Mykorrhizapartner
- Allgemeine Artbeziehung: Mykorrhizapartner: Picea (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Abies (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Pinus (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Fagus (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Betula (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Picea abies (allgemeine Partnerliste).
Außerkulinarische Verwendungen
Hinsichtlich nicht-kulinarischer Anwendungen des Gemeinen Steinpilzes verzeichnen wissenschaftliche Quellen (unter anderem eine Publikation in IMA Fungus, doi:10.1186/s43008-024-00156-7) vereinzelte, lokale ethnomykologische Berichte. Bei Feldforschungen zum traditionellen Wissen über Pilze wurde eine Überlieferung über die volkstümliche Praxis einer lokalen Anwendung von Fruchtkörpern dieser Art bei Hautkrankheiten dokumentiert.
Diese Aufzeichnung stellt ausschließlich die Beschreibung eines vorgefundenen ethnomykologischen Berichts und ein Element lokaler Kräuterfolklore dar, ohne wissenschaftliche Bestätigung einer biologischen Wirksamkeit oder Heilwirkung. Die moderne mykologische und ethnobiologische Literatur betrachtet diese Erwähnung lediglich als Zeugnis früherer Bräuche, ohne jegliche therapeutische Empfehlungen, medizinische Ratschläge oder Anwendungsrezepturen zu formulieren. Jegliche nicht-kulinarische Nutzung des Gemeinen Steinpilzes hatte im Vergleich zu seiner allgemeinen Bestimmung als Nahrungsmittel einen marginalen und rein historischen Charakter.
Geschichte und Kultur
Der Gemeine Steinpilz nimmt einen grundlegenden Platz in der europäischen Kultur und Waldtradition ein und gilt in Sammeltraditionen weithin als angesehenster Pilz. In der Geschichte der wissenschaftlichen Mykologie war die formelle Beschreibung und Vergabe des Artnamens Boletus edulis durch den französischen Naturforscher Jean Baptiste Bulliard im Jahr 1782 ein zentraler Moment.
In der polnischen Literaturtradition wurde das Motiv des Steinpilzes im III. Buch des Epos „Pan Tadeusz“ von Adam Mickiewicz („Umizgi“ – Das Werben) verewigt, wo in der Schilderung des Pilzesammelns eine Erwähnung des Steinpilzes auftaucht, der im Lied als „Oberst der Pilze“ bezeichnet wird. Dieser Verweis ist jedoch nicht unmittelbar mit der modernen, strengen taxonomischen Auffassung der Art gleichzusetzen, sondern mit der früheren, kulturellen Wahrnehmung edler Waldpilze.
Die Bedeutung dieses Pilzes in der Volkskultur Mittel- und Osteuropas wird durch moderne ethnobiologische Forschungen bestätigt, unter anderem durch Traditionsanalysen im ukrainisch-rumänischen Grenzgebiet. Diese weisen auf die außergewöhnliche Beständigkeit des Wissens über den Steinpilz im kollektiven Gedächtnis lokaler Gemeinschaften hin. Der Pilz besitzt zudem eine starke festliche und rituelle Symbolik und stellt als Symbol der Verbundenheit mit der Natur ein traditionelles Element des Heiligabend-Essens dar.
Essbarkeit und Sicherheit
Der Gemeine Steinpilz ist ein weithin geschätzter Speisepilz mit einem milden, nussigen Geschmack und einem ausgeprägten Waldaroma, das sich beim Trocknen noch verstärkt. Zu Konsumzwecken werden gesunde, frische Fruchtkörper gesammelt. Der Verzehr alter, überreifer oder von Schimmel befallener Fruchtkörper kann zu unechten Vergiftungen führen, die durch Zersetzungsprozesse des Gewebes hervorgerufen werden. Standardpraxis bei der Zubereitung für den Verzehr ist die thermische Behandlung des Pilzes (Kochen, Schmoren, Braten), während das Trocknen ein Verfahren zu seiner Konservierung darstellt.
Die Verzehrstraditionen weisen regionale Unterschiede auf. In Polen sowie in Mittel- und Osteuropa ist der Gemeine Steinpilz ein grundlegendes Pilzprodukt, das traditionell getrocknet und mariniert wird. In Italien, wo er als Porcino bekannt ist, stellt er eine traditionelle Zutat für Schmor- und Pfannengerichte dar. In Frankreich wird er unter dem Namen Cèpe verbreitet in der regionalen Gastronomie verwendet, während in westeuropäischen Küchen seine Beliebtheit unter dem Einfluss kulinarischer Traditionen des Südens des Kontinents zugenommen hat.
Lebensraum und Vorkommen
Der Gemeine Steinpilz kommt in der gemäßigten und borealen Zone der Nordhalbkugel vor und wächst in Nadel-, Laub- sowie Mischwäldern. Als Ektomykorrhizapilz geht er Verbindungen mit vielen Waldbaumarten ein. Nach taxonomisch-ökologischen Untersuchungen gehören zu seinen Hauptmykorrhizapartnern Nadelbäume, darunter Fichte (Picea), Kiefer (Pinus) und Tanne (Abies), sowie Laubbäume, vor allem Eiche (Quercus), Buche (Fagus), Birke (Betula) und Kastanie (Castanea).
Die Art besiedelt unterschiedliche Typen von Waldböden, meist mit saurer Reaktion, darunter sandige, sandig-lehmige und humose Substrate, nicht selten in einer Bodenvegetation aus Moosen und Heidelbeeren. Sie kommt sowohl im Flachland als auch in hügeligen sowie gebirgigen Regionen vor.
Die in Übersichten dokumentierten Beobachtungszeiträume für Fruchtkörper in Mitteleuropa umfassen in Polen die Zeit von Juni bis November (VI–XI), in Tschechien hingegen von Juni bis Oktober (VI–X). Diese Zeitspannen stecken den zeitlichen Rahmen für Feldfunde der Fruchtkörper in Abhängigkeit von den Witterungsbedingungen ab, ohne unbegründet monatliche Höhepunkte hervorzuheben oder regionale Häufigkeitsvergleiche anzustellen.
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Speisewert
- Essbar — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Kulinarische Bewertung
- Sehr schmackhaft
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Handel
- Für den Handel zugelassen
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Boletus edulis Bull.
- Frühere wissenschaftliche Namen
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Umfang des Taxons und Bestimmungsgrenzen
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Ökologie und Verbreitung
Labordiagnostik
Dane ustrukturyzowane
Basidien
Kaulozystiden
Huthaut
Reaktionen mit Reagenzien
- Amyloidreaktion
- Amyloidreaktion: negativ. [14]
Sporen
- Sporenfarbe unter dem Mikroskop
- Sporenfarbe unter dem Mikroskop: gelbbraun. [20]
- Tropfen im Inneren der Spore
- Tropfen im Inneren der Spore: vorhanden. [21]
- Sporenlänge
- Sporenlänge: 16–19 µm. [20]
Sporenlänge: 12–18 µm. [17]
Sporenlänge: 12–19,5 µm. [14]
Sporenlänge: 14–18 µm. [24]
Sporenlänge: 13–16,5 µm. [21] - Verhältnis von Sporenlänge zu Sporenbreite
- Verhältnis von Sporenlänge zu Sporenbreite: 2,5–3,9. [14]
Verhältnis von Sporenlänge zu Sporenbreite: 2,8–3,6. [21]
Verhältnis von Sporenlänge zu Sporenbreite: 2,7–3,4. [20] - Sporenform
- Sporenform: spindelförmig. [24]
Sporenform: langgestreckt ellipsoid. [17]
Sporenform: spindelförmig. [17]
Sporenform: spindelförmig. [21]
Sporenform: ellipsoid. [21]
Sporenform: spindelförmig. [20] - Sporenoberfläche
- Sporenoberfläche: glatt. [24]
Sporenoberfläche: glatt. [17]
Sporenoberfläche: glatt. [21]
Sporenoberfläche: glatt. [20] - Sporenwanddicke
- Sporenwanddicke: dickwandig. [20]
Untersuchungsmaterial und -methoden
- In den Quellen dokumentierte Ergebnisse — Länge der Endzelle der Huthaut
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - In den Quellen dokumentierte Ergebnisse — Breite der Endzelle der Huthaut
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - In den Quellen dokumentierte Ergebnisse — Sporenlänge
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - In den Quellen dokumentierte Ergebnisse — Verhältnis von Sporenlänge zu Sporenbreite
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - In den Quellen dokumentierte Ergebnisse — Sporenbreite
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Überprüfung des Vorkommens — Umfang und Grenzen
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Probenvorbereitung für die Mikroskopie
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Bearbeitungsumfang
Vor dem Abschluss muss der Datensatz ergänzt oder abgerechnet werden.
- Suche nach Vorkommensregionen erfordert Abrechnung.
- Verknüpfungen früherer Feststellungen erfordern eine erneute Überprüfung.
- Neue Quellen erfordern die Abrechnung von Informationen, die bei der Durchsicht festgestellt wurden.
Rechtsgrundlage und Bewertungsumfang
Vorschriften für Standort: Polen
Wichtigste Inhaltsstoffe und ihre Wirkung
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Lebensraum und Vorkommen
Lebensraum, Gebiet und Jahreszeit
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Quellen |
|---|---|---|---|
| Tschechien | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Polen | Niederschlesien — von der Quelle bezeichneter Bereich | VI–XI |
|
Quellen
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis