
Valgomas

Leidžiamas prekybai
Nustatykite vietovę, kad matytumėte savo regiono duomenis.


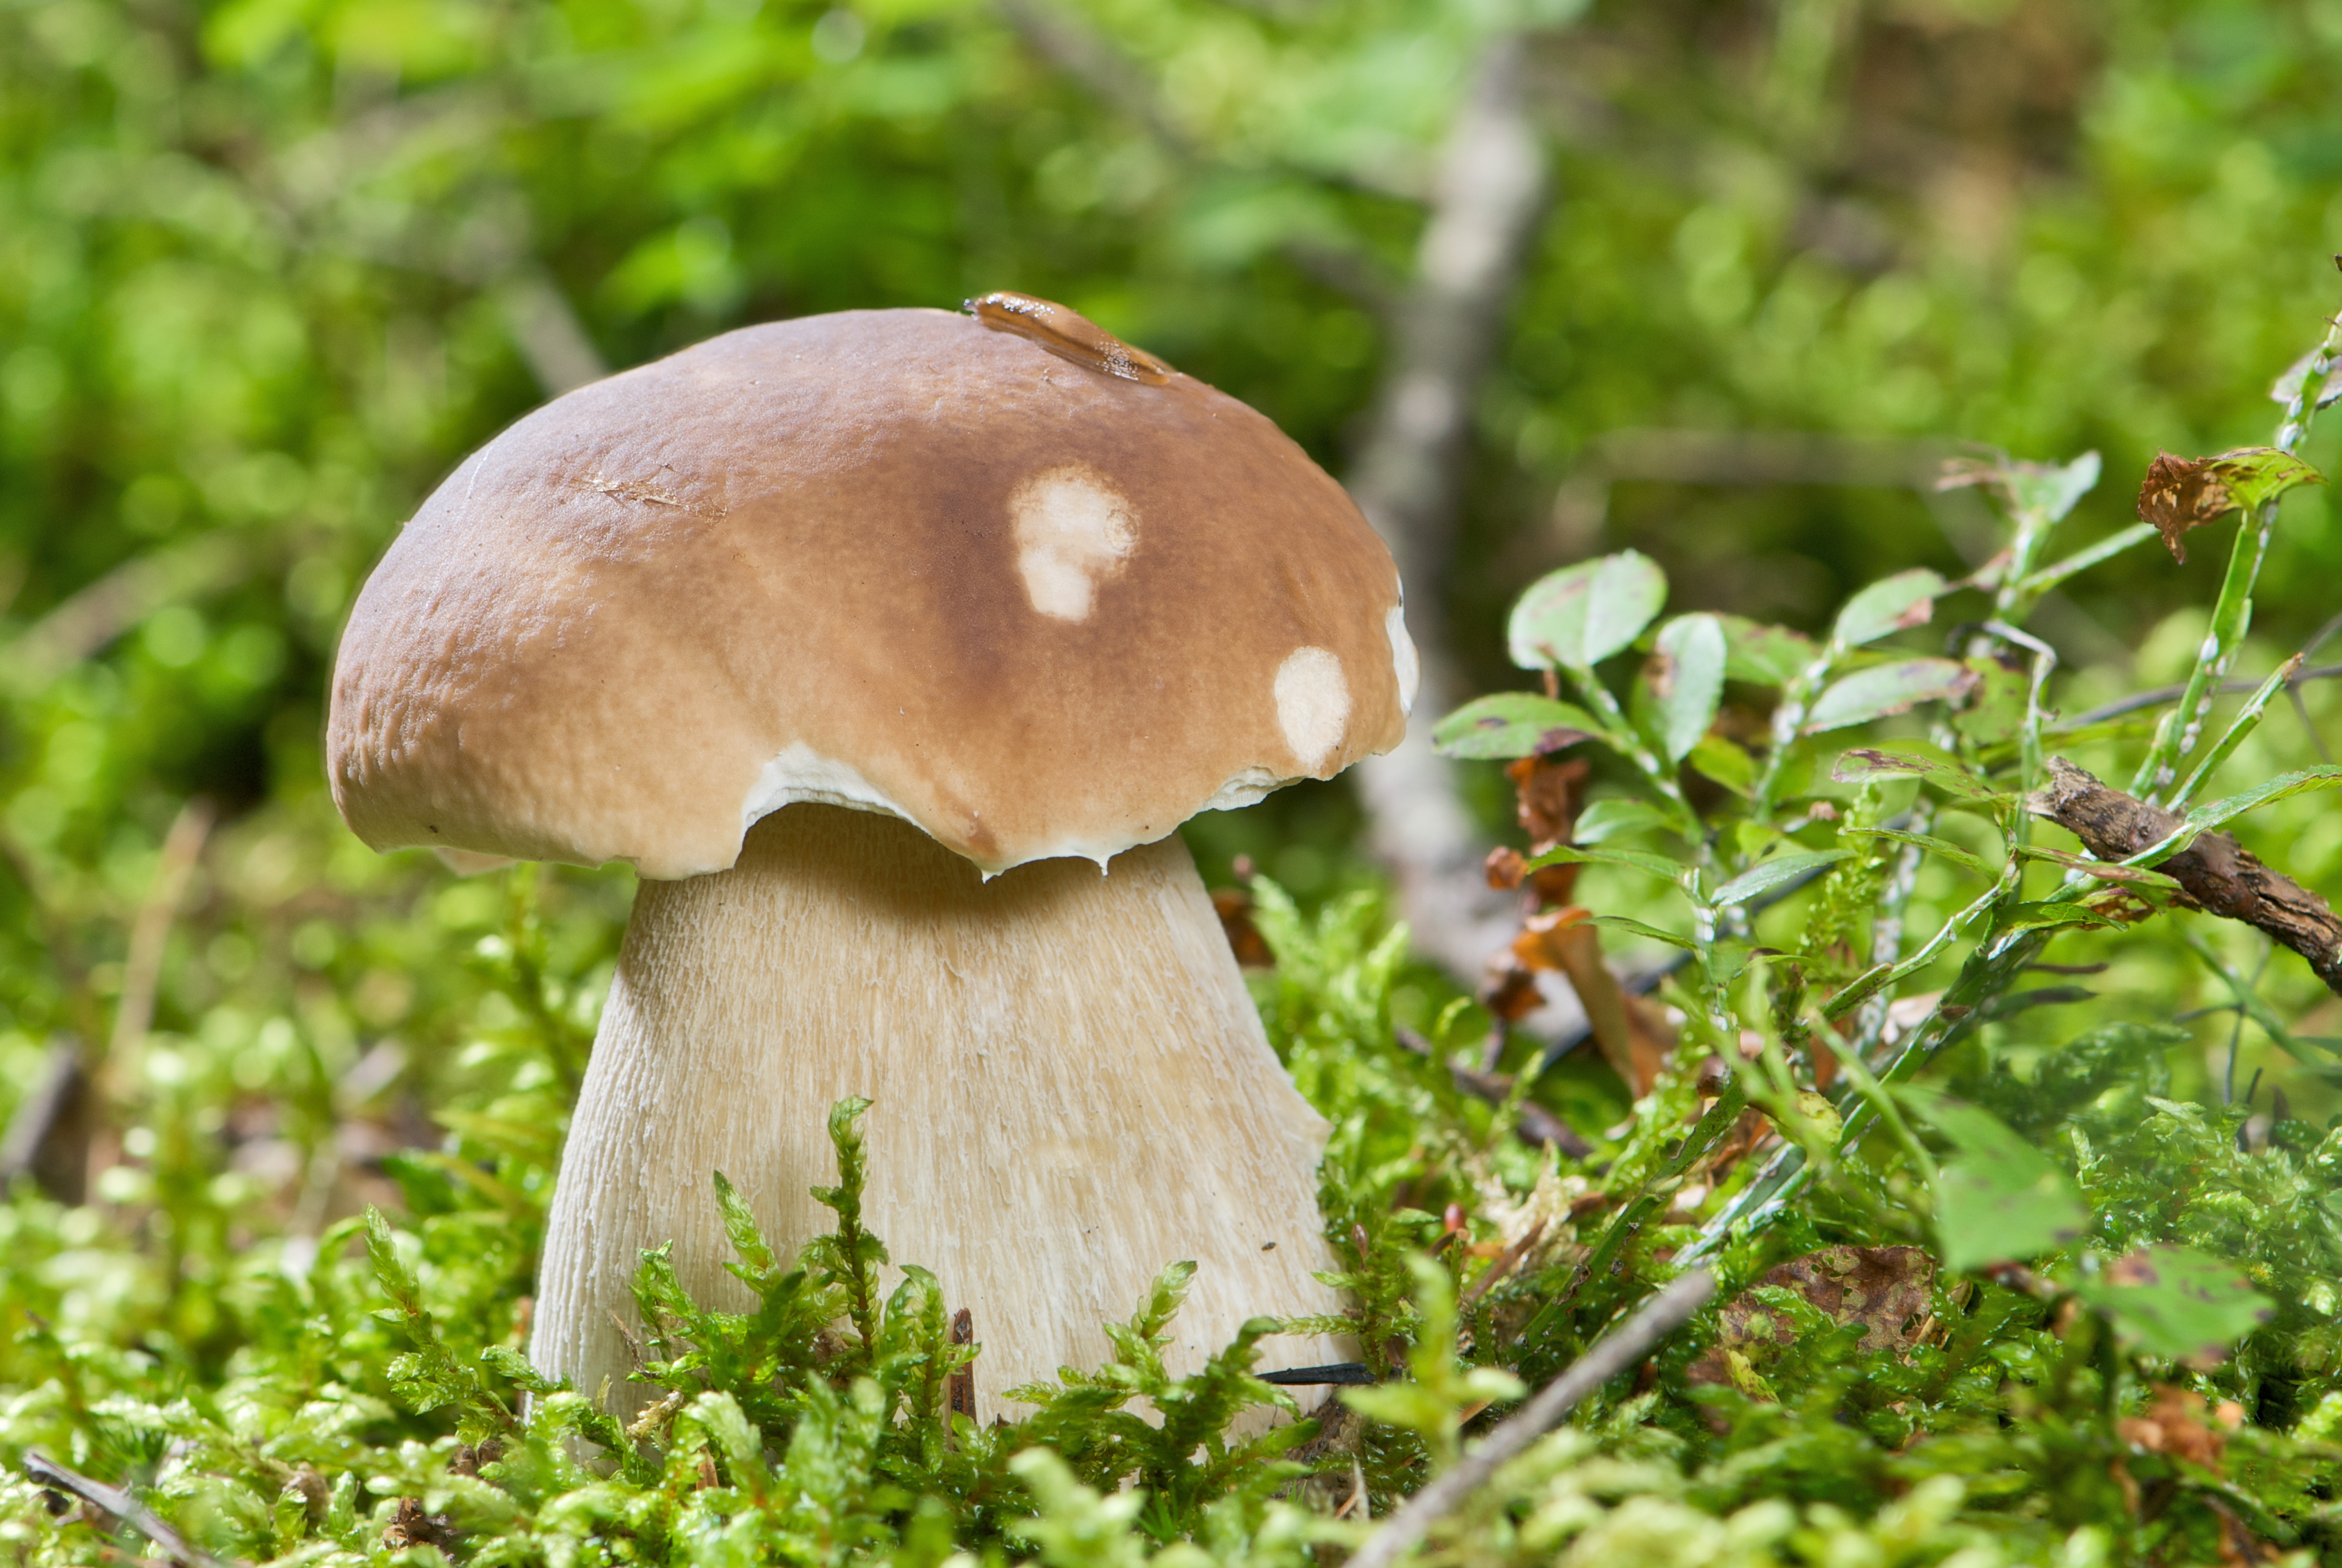


Tikrinis baravykas (Boletus edulis) – tai vertinamas valgomas grybas, augantis spygliuočių, lapuočių ir mišriuose miškuose rūgščiose dirvose. Formuoja vaisiakūnius su mėsinga, ruda kepurėle bei kotu, padengtu smulkiu, balkšvu arba šviesiai rudu tinkleliu. Vamzdelių poros jaunų grybų yra baltos, o subrendusių keičia spalvą į geltoną iki geltonai alyvinės. Balta trama nekeičia spalvos perpjovus. Ši rūšis sudaro mikorizę su įvairiais medžiais, tarp jų egle, kėniu, pušimi, buku ir beržu.
Atpažinimas, buveinė ir svarbiausi skirtumai.
Grybautojas
Vaisiakūnio sandara
- Vaisiakūnio sandaros tipas
- Vaisiakūnio sandaros tipas: Kepurėlė, kotas.
Kepurėlė
- Kepurėlės forma
- jaunų vaisiakūnių: Kepurėlės forma: pusiau rutuliška.
subrendusių vaisiakūnių: Kepurėlės forma: išgaubtas.
subrendusių vaisiakūnių: Kepurėlės forma: plokščia. - Kepurėlės paviršiaus reljefas
- Kepurėlės paviršiaus reljefas: lygus.
Kepurėlės paviršiaus reljefas: raukšlėtas. - Kepurėlės danga
- Kepurėlės danga: plikas.
- Kepurėlės paviršiaus blizgesys
- kai šlapias: Kepurėlės paviršiaus blizgesys: blizgus.
- Kepurėlės lipnumas ir gleivėtumas
- kai šlapias: Kepurėlės lipnumas ir gleivėtumas: lipnus.
kai šlapias: Kepurėlės lipnumas ir gleivėtumas: gleivėtas. - Kepurėlės spalva
- Kepurėlės spalva: smėlio spalvos.
Kepurėlės spalva: rudas.
Kepurėlės spalva: tamsiai rudas.
subrendusių vaisiakūnių: Kepurėlės spalva: tamsiai rudas.
jaunų vaisiakūnių: Kepurėlės spalva: šviesiai rudas.
Kepurėlės spalva: šviesiai rudas.
Kepurėlės spalva: šviesios ochros spalvos.
Kepurėlės spalva: ochriškai rudas.
subrendusių vaisiakūnių: Kepurėlės spalva: rausvai rudas.
Kepurėlės spalva: baltas (kepurėlės krašte). - Kepurėlės skersmuo
- Kepurėlės skersmuo – 50–300 mm.
Kepurėlės apačia
- Himenoforo tipas
- Himenoforo tipas: vamzdeliai.
Vamzdeliai prie koto
- Himenoforo prisitvirtinimas prie koto
- Himenoforo prisitvirtinimas prie koto: priaugęs prie koto (vamzdeliai).
- Himenoforo profilis ties kotu
- Himenoforo profilis ties kotu: išlinkęs ties kotu (vamzdeliai).
- Himenoforo atskiriamumas nuo kepurėlės
- Himenoforo atskiriamumas nuo kepurėlės: lengvai atskiriamas (vamzdeliai).
- Porų forma
- jaunų vaisiakūnių: Porų forma: apvalus.
subrendusių vaisiakūnių: Porų forma: kampuoti. - Pažeistų porų spalva
- Pažeistų porų spalva: spalva nesikeičia.
Pažeistų porų spalva: spalva nesikeičia. - Vamzdelių spalva po pažeidimo
- Vamzdelių spalva po pažeidimo: spalva nesikeičia.
- Natūrali porų spalva
- jaunų vaisiakūnių: Natūrali porų spalva: baltas.
subrendusių vaisiakūnių: Natūrali porų spalva: geltonas.
subrendusių vaisiakūnių: Natūrali porų spalva: gelsvai alyvinis.
subrendusių vaisiakūnių: Natūrali porų spalva: alyvuogių žalsvai geltona.
jaunų vaisiakūnių: Natūrali porų spalva: balsva.
subrendusių vaisiakūnių: Natūrali porų spalva: geltonai žalias. - Natūrali vamzdelių spalva
- subrendusių vaisiakūnių: Natūrali vamzdelių spalva: kreminis.
subrendusių vaisiakūnių: Natūrali vamzdelių spalva: blyškiai geltonas.
jaunų vaisiakūnių: Natūrali vamzdelių spalva: baltas.
subrendusių vaisiakūnių: Natūrali vamzdelių spalva: gelsvai alyvinis.
subrendusių vaisiakūnių: Natūrali vamzdelių spalva: alyvuogių žalsvai geltona.
jaunų vaisiakūnių: Natūrali vamzdelių spalva: balsva.
subrendusių vaisiakūnių: Natūrali vamzdelių spalva: geltonas.
subrendusių vaisiakūnių: Natūrali vamzdelių spalva: geltonai žalias.
Kotas ir pamatas
- Koto forma
- jaunų vaisiakūnių: Koto forma: statinaitės formos.
subrendusių vaisiakūnių: Koto forma: buožiškas.
Koto forma: cilindriškas.
Koto forma: buožiškas.
Koto forma: siaurėjantis pagrindo link. - Koto pagrindas
- Koto pagrindas: buožiškas.
Koto pagrindas: sustorėjusi. - Koto spalva
- Koto spalva: balsva.
Koto spalva: šviesiai rudas. - Koto paviršiaus reljefas
- viršutinėje koto dalyje: Koto paviršiaus reljefas: tinkliškas.
- Koto ilgis
- Koto ilgis: 20–300 mm.
- Koto skersmuo
- Koto skersmuo: 15–120 mm.
- Koto tinklelio spalva
- viršutinėje koto dalyje: Koto tinklelio spalva: balsva.
viršutinėje koto dalyje: Koto tinklelio spalva: šviesiai rudas.
viršutinėje koto dalyje: Koto tinklelio spalva: baltas.
Trama
- Minkštimo spalva
- Minkštimo spalva: baltas.
Minkštimo spalva: rausvai rudas (kepurėlės minkštimas, po odele).
Minkštimo spalva: rausvas (kepurėlės minkštimas, po odele).
Minkštimo spalva: rusvas (minkštimas ties koto pagrindu). - Minkštimo standumas
- jaunų vaisiakūnių: Minkštimo standumas: standus.
subrendusių vaisiakūnių: Minkštimo standumas: minkštas. - Minkštimo skonis
- Minkštimo skonis: silpnas.
- Minkštimo elastingumas
- jaunų vaisiakūnių: Minkštimo elastingumas: elastingas.
- Minkštimo struktūra
- subrendusių vaisiakūnių: Minkštimo struktūra: vatiškas.
senų vaisiakūnių: Minkštimo struktūra: kempiniškas. - Pažeisto minkštimo spalva
- Pažeisto minkštimo spalva: spalva nesikeičia.
Pažeisto minkštimo spalva: spalva nesikeičia.
Pažeisto minkštimo spalva: spalva nesikeičia. - Minkštimo kvapas
- Minkštimo kvapas: grybų, silpnas.
Minkštimo kvapas: silpnas. - Minkštimo skonio atspalvis
- Minkštimo skonio atspalvis: riešutinis.
Kur ir kada auga
- Buveinė
- Buveinė: spygliuočių miškas.
Buveinė: lapuočių miškas.
Buveinė: mišrus miškas. - Substratas
- Substratas: dirvožemis.
- Vaisiakūnių augimo pobūdis
- Vaisiakūnių augimo pobūdis: pavieniui.
Vaisiakūnių augimo pobūdis: grupėmis. - Aptikimo dažnumas
- Aptikimo dažnumas: dažnas.
- Derėjimo laikotarpis
- Vaisiakūniai pasirodo nuo birželio iki lapkričio.
- Paplitimo sritis
Valgomumas ir virtuvė
- Valgomumas
- Valgomas
- Kulinarinis įvertinimas
- Labai skanus
Teisė
Taisyklės vietovei: Lenkija
- Apsauga
- Lenkijoje Boletus edulis netaikoma įstatyminė rūšies apsauga.
- Prekyba
- Leidžiamas prekybai
Su kuo galima supainioti
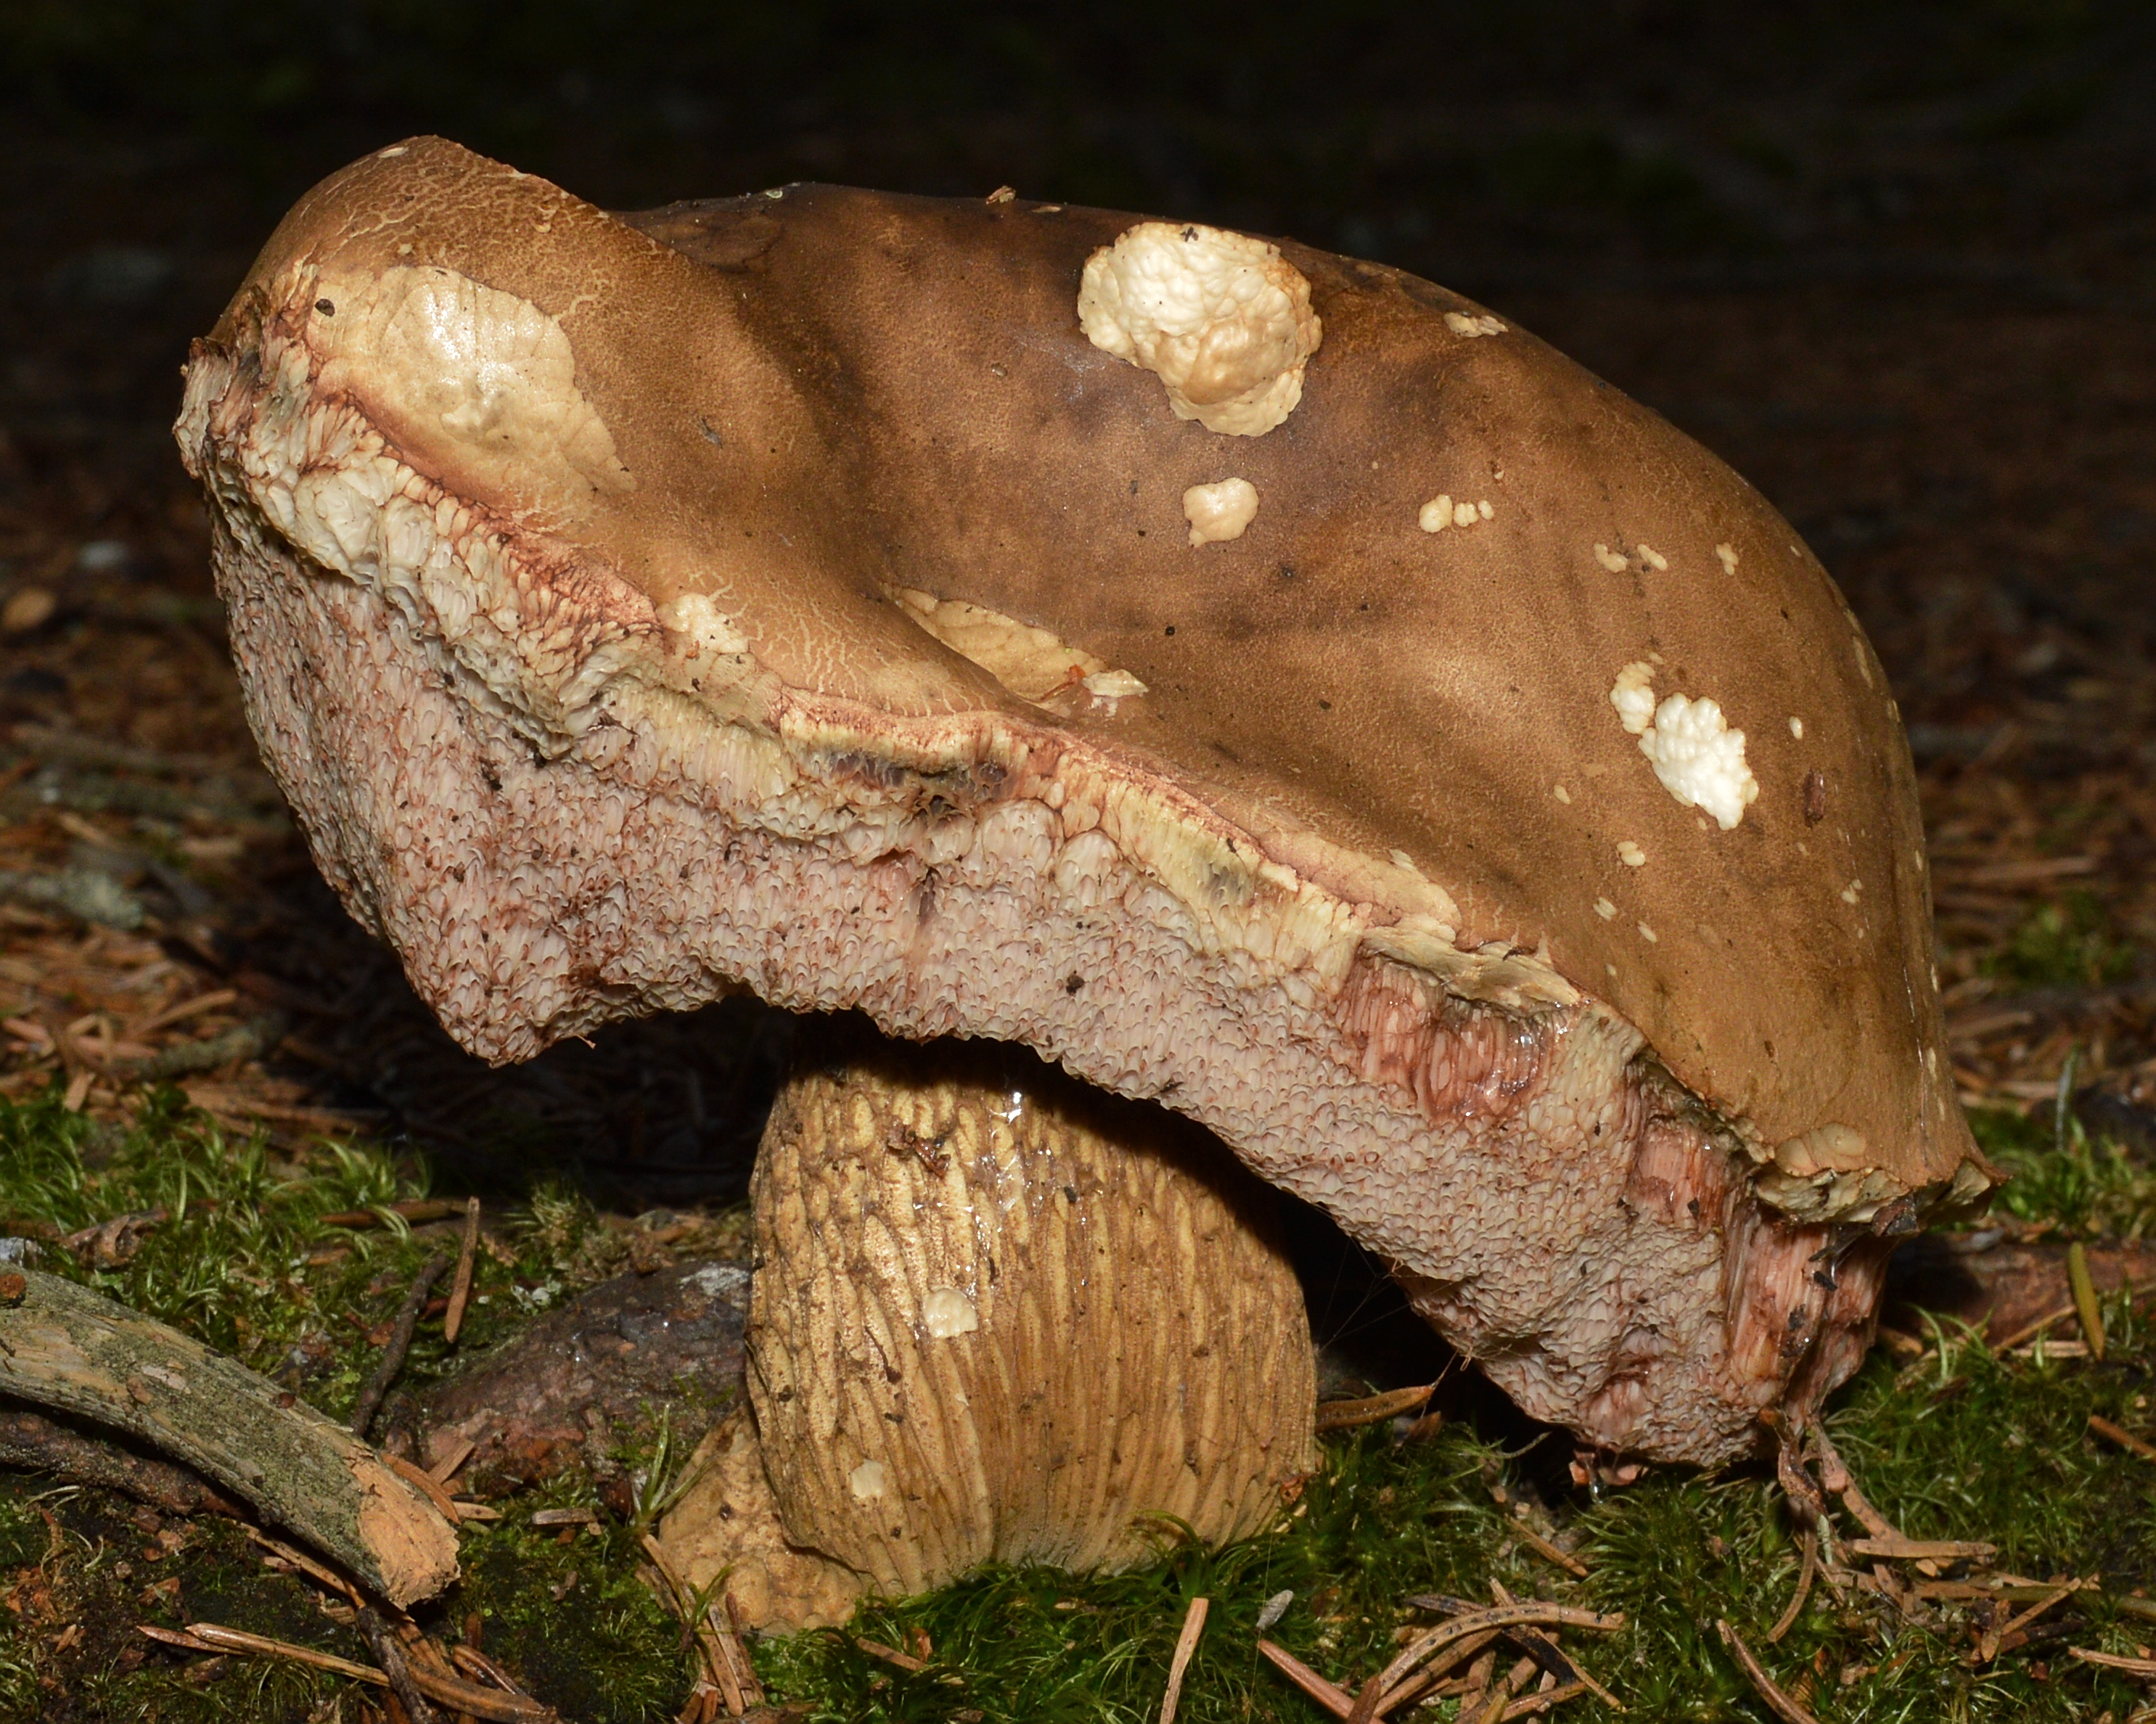
Tylopilus felleus
Svarbiausi skirtumai
Jauni karčiojo pušynbaravykio (Tylopilus felleus) egzemplioriai turi balkšvas poras, todėl kartais painiojami su tikriniu baravyku. Tačiau bręstant jo poros tampa purvinai rausvos, tinklelis ant koto yra stambus, tamsus ir iškilus, o kepurėlė išlieka matinė ir zomšinė. Karčiojo pušynbaravykio minkštimas pasižymi intensyviu kartumu, kurio nepašalina nei virimas, nei džiovinimas, todėl net vienas vaisiakūnis sugadina viso patiekalo skonį.
Tikrinis baravykas (Boletus edulis) savo forma ir ruda kepurėle primena jauną kartųjį pušynbaravykį. Tačiau skiriasi šviesesniu, iš pradžių baltu kotu, padengtu švelniu, šviesiu tinkleliu (matomu daugiausia viršutinėje jo dalyje). Be to, tikrinio baravyko vamzdeliai ir poros senstant keičia spalvą iš baltos į geltonai žalią bei alyvuogių žalią, o karčiojo pušynbaravykio – rausvėja.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Nuotraukos šaltinis · Public domainBoletus reticulatus
Svarbiausi skirtumai
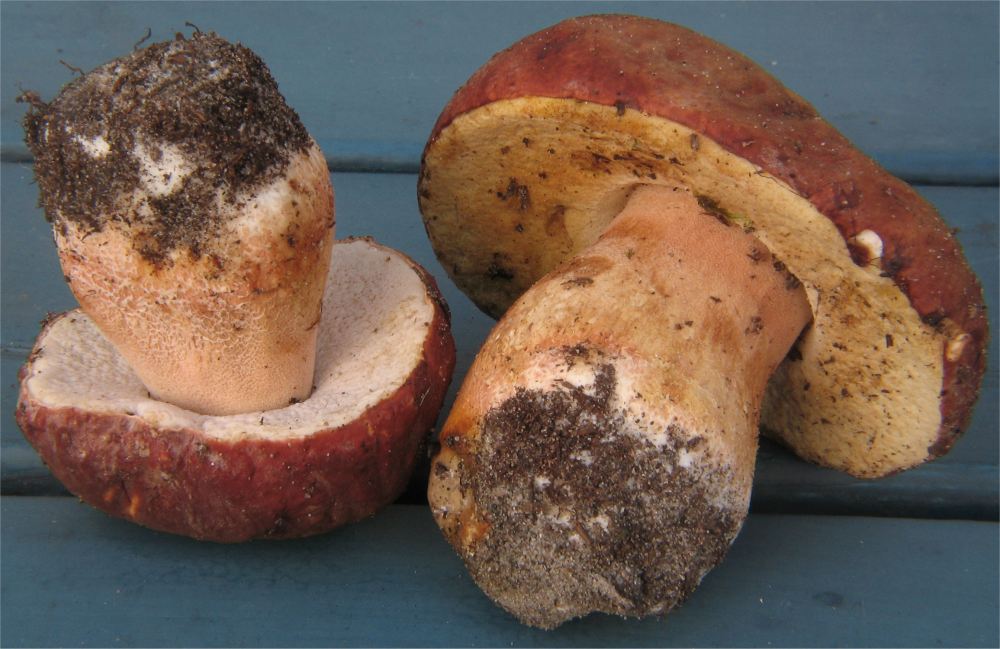
Vasarinis baravykas (Boletus reticulatus) pasižymi matiniu, zomšiniu arba ilgai tarsi apšarmojusiu kepurėlės paviršiumi, kuris per sausrą dažnai sutrūkinėja į smulkius laukelius, ir ryškiu tinkleliu, dažnai dengiančiu beveik visą kotą. Auga daugiausia po bukais ir ąžuolais, pasirodydamas sezone paprastai anksčiau nei tikrinis baravykas. Dėl abiejų rūšių paviršiaus požymių ir tinklelio paplitimo kintamumo, vien koto akučių išsidėstymas ne visada leidžia jas vienareikšmiškai atskirti.
Tikrinis baravykas (Boletus edulis) paprastai turi lygesnį kepurėlės paviršių, kuris drėgnu oru tampa lipnus ir gleivėtas, o jo krašte dažnai matomas siauras, šviesesnis apvadas. Tikrinio baravyko koto tinklelis apskritai yra subtilesnis ir apribotas daugiausia viršutine jo dalimi. Vasarinio baravyko kepurėlė paprastai yra sausa, zomšinė ir linkusi trūkinėti, o koto tinklelis – šviesesnis ir ryškesnis, nors pats tinklelio plotas nėra lemiamas skiriamasis kriterijus.
Boletus pinophilus
Svarbiausi skirtumai
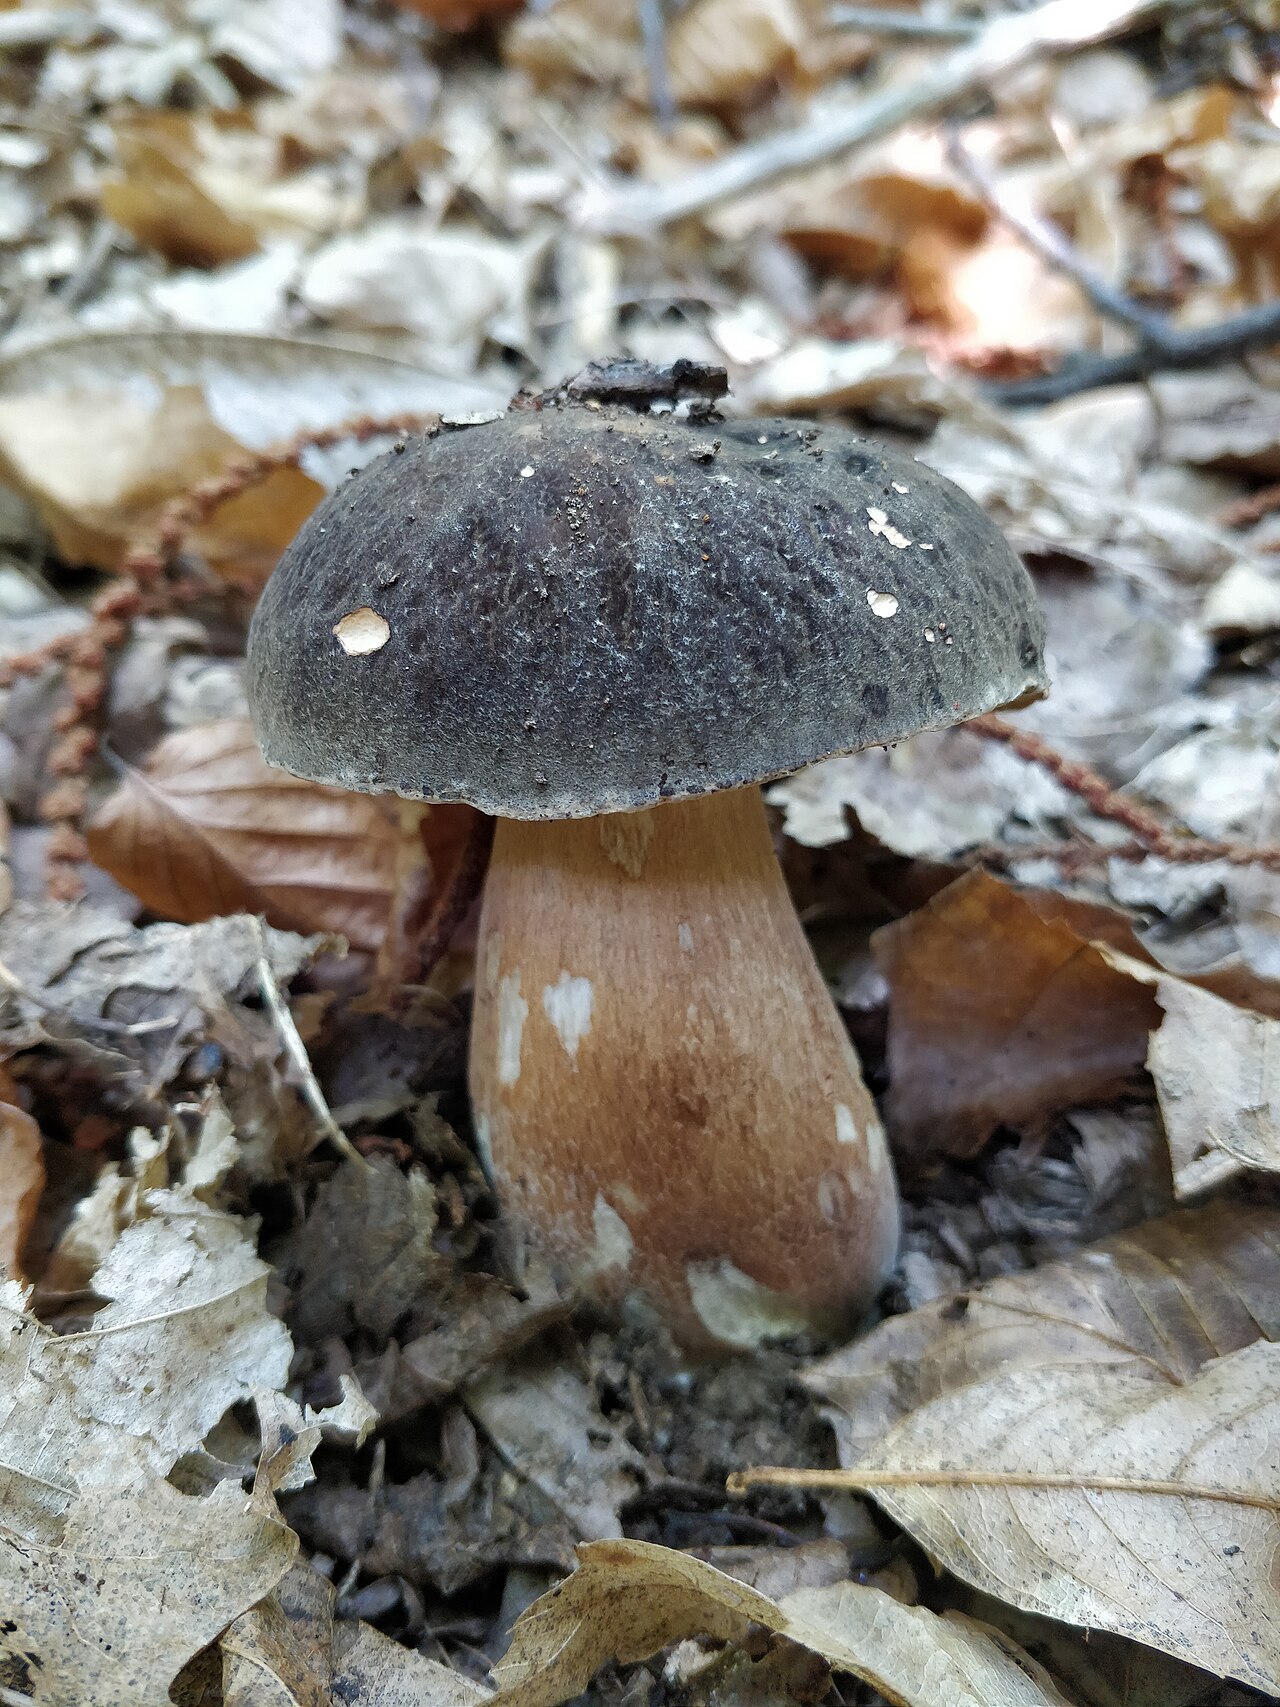
Pušyninis baravykas (Boletus pinophilus) pasižymi tamsia, raudonai ruda arba beveik juodai ruda kepurėle ir auga daugiausia kartu su pušimis. Mikroskopinėje sandaroje išsiskiria stora, suželatinėjusia luobele bei galiniais elementais, kurių plotis siekia iki 27 µm, turinčiais raudonai rudą prisieninį inkrustuojantį pigmentą, tirpstantį kalio hidrokside (KOH).
Tikrinio baravyko (Boletus edulis) kepurėlė būna nuo šviesiai rudos iki tamsiai rudos spalvos atspalvių, kartais su gelsvu ar rausvu tonu, tačiau jos paviršius yra plikas, riebokšnis, o koto tinklelis dažniausiai smulkus ir apribotas viršutine dalimi. Mikroskopiškai B. edulis luobelės galiniai elementai yra 4–19 µm pločio, o pigmentas yra ląstelių viduje. Rausvo atspalvio buvimas ir pušų kaimynystė nėra išskirtiniai B. pinophilus bruožai, nes B. edulis taip pat auga pušynuose ant neturtingo, rūgštaus smėlio.
Boletus aereus
Svarbiausi skirtumai
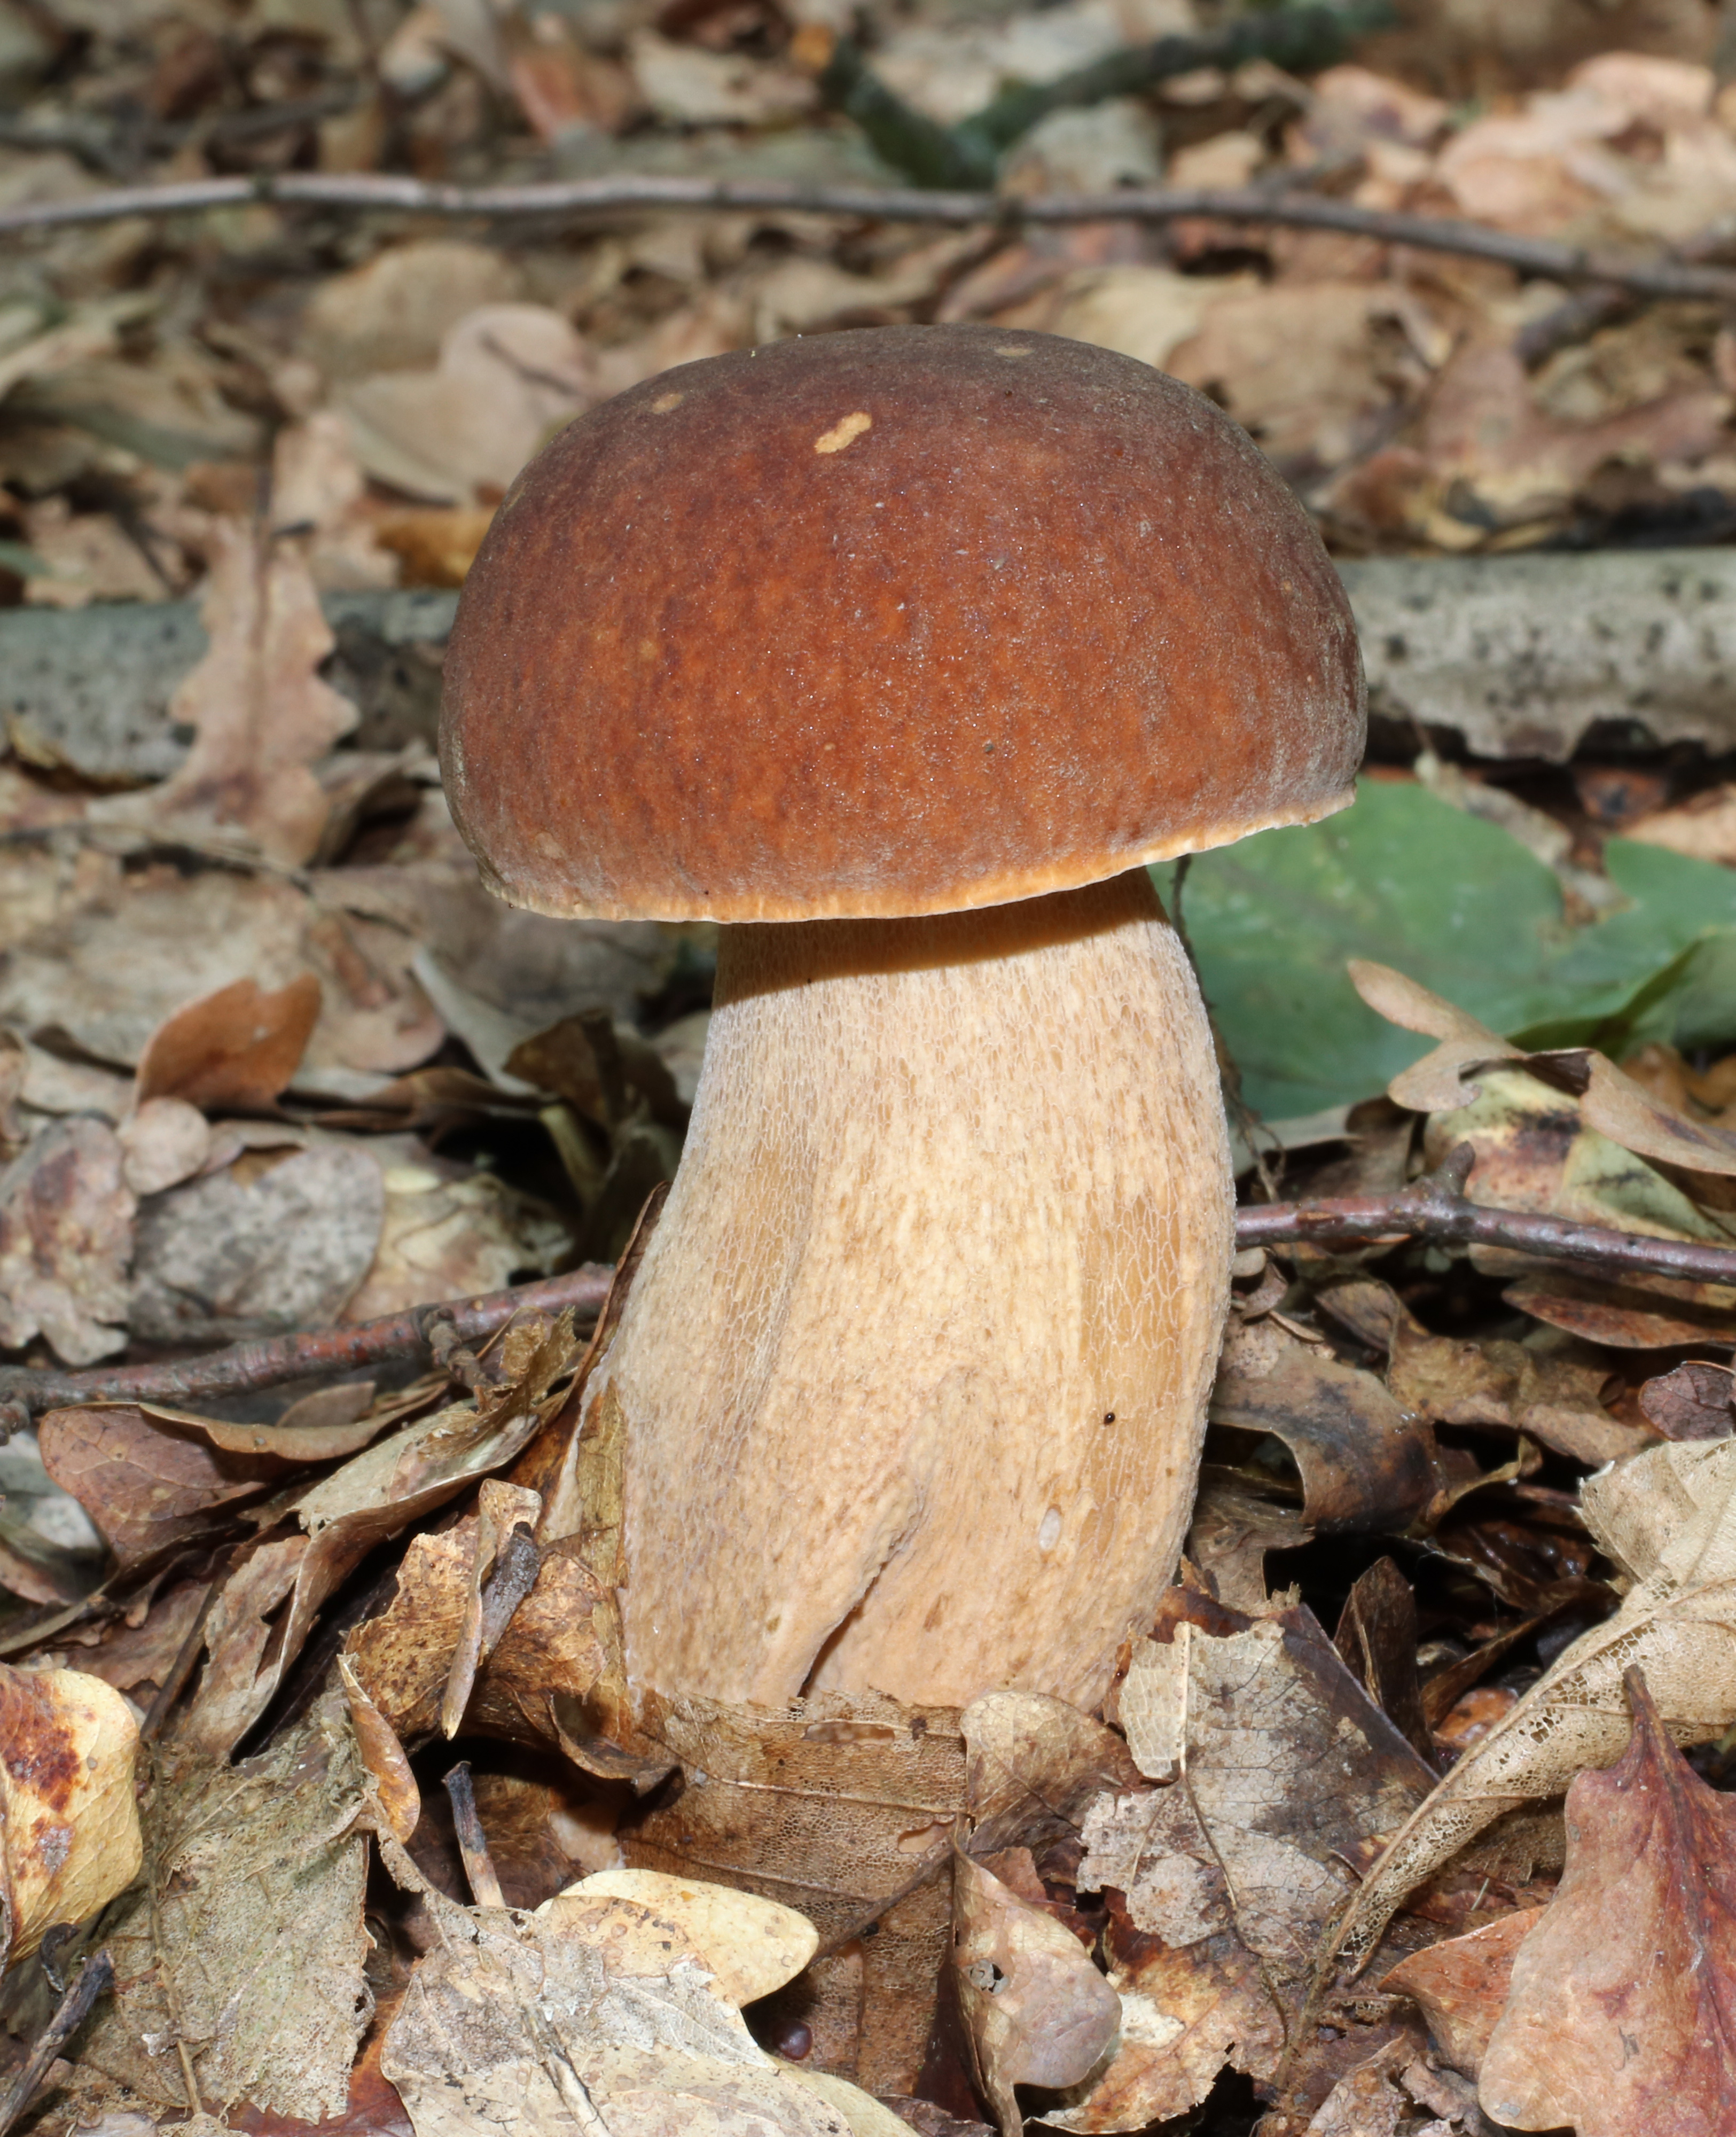
Tikrinis baravykas (Boletus edulis) išsiskiria lygia, drėgnomis sąlygomis riebia liečiant kepurėlės luobele, platesne šviesesnių ir tamsesnių rudos spalvos atspalvių palete bei balkšvu tinkleliu, paprastai esančiu viršutinėje koto pusėje (rečiau nusileidžiančiu žemiau). Mikroskopiškai galiniai kepurėlės luobelės elementai pas B. edulis yra 4–19 µm pločio, tuo tarpu pas B. aereus kepurėlė yra sausa, smulkiai veltiniška ir labai tamsi, nors atskiri nuspalvinimo požymiai gali persidengti.
Tamsiabrūvis baravykas (Boletus aereus) auga šiltuose lapuočių miškuose, daugiausia ąžuolynuose, taip pat kalkingose dirvose, rečiau po kaštonais. Turi labai tamsią, sausą, švelniai pūkuotą kepurėlę. Po mikroskopu galiniai jo luobelės elementai siekia iki 11 µm pločio ir turi smulkiagrūdį viduląstelinį pigmentą.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Nuotraukos šaltinis · CC BY 3.0Caloboletus calopus
Svarbiausi skirtumai
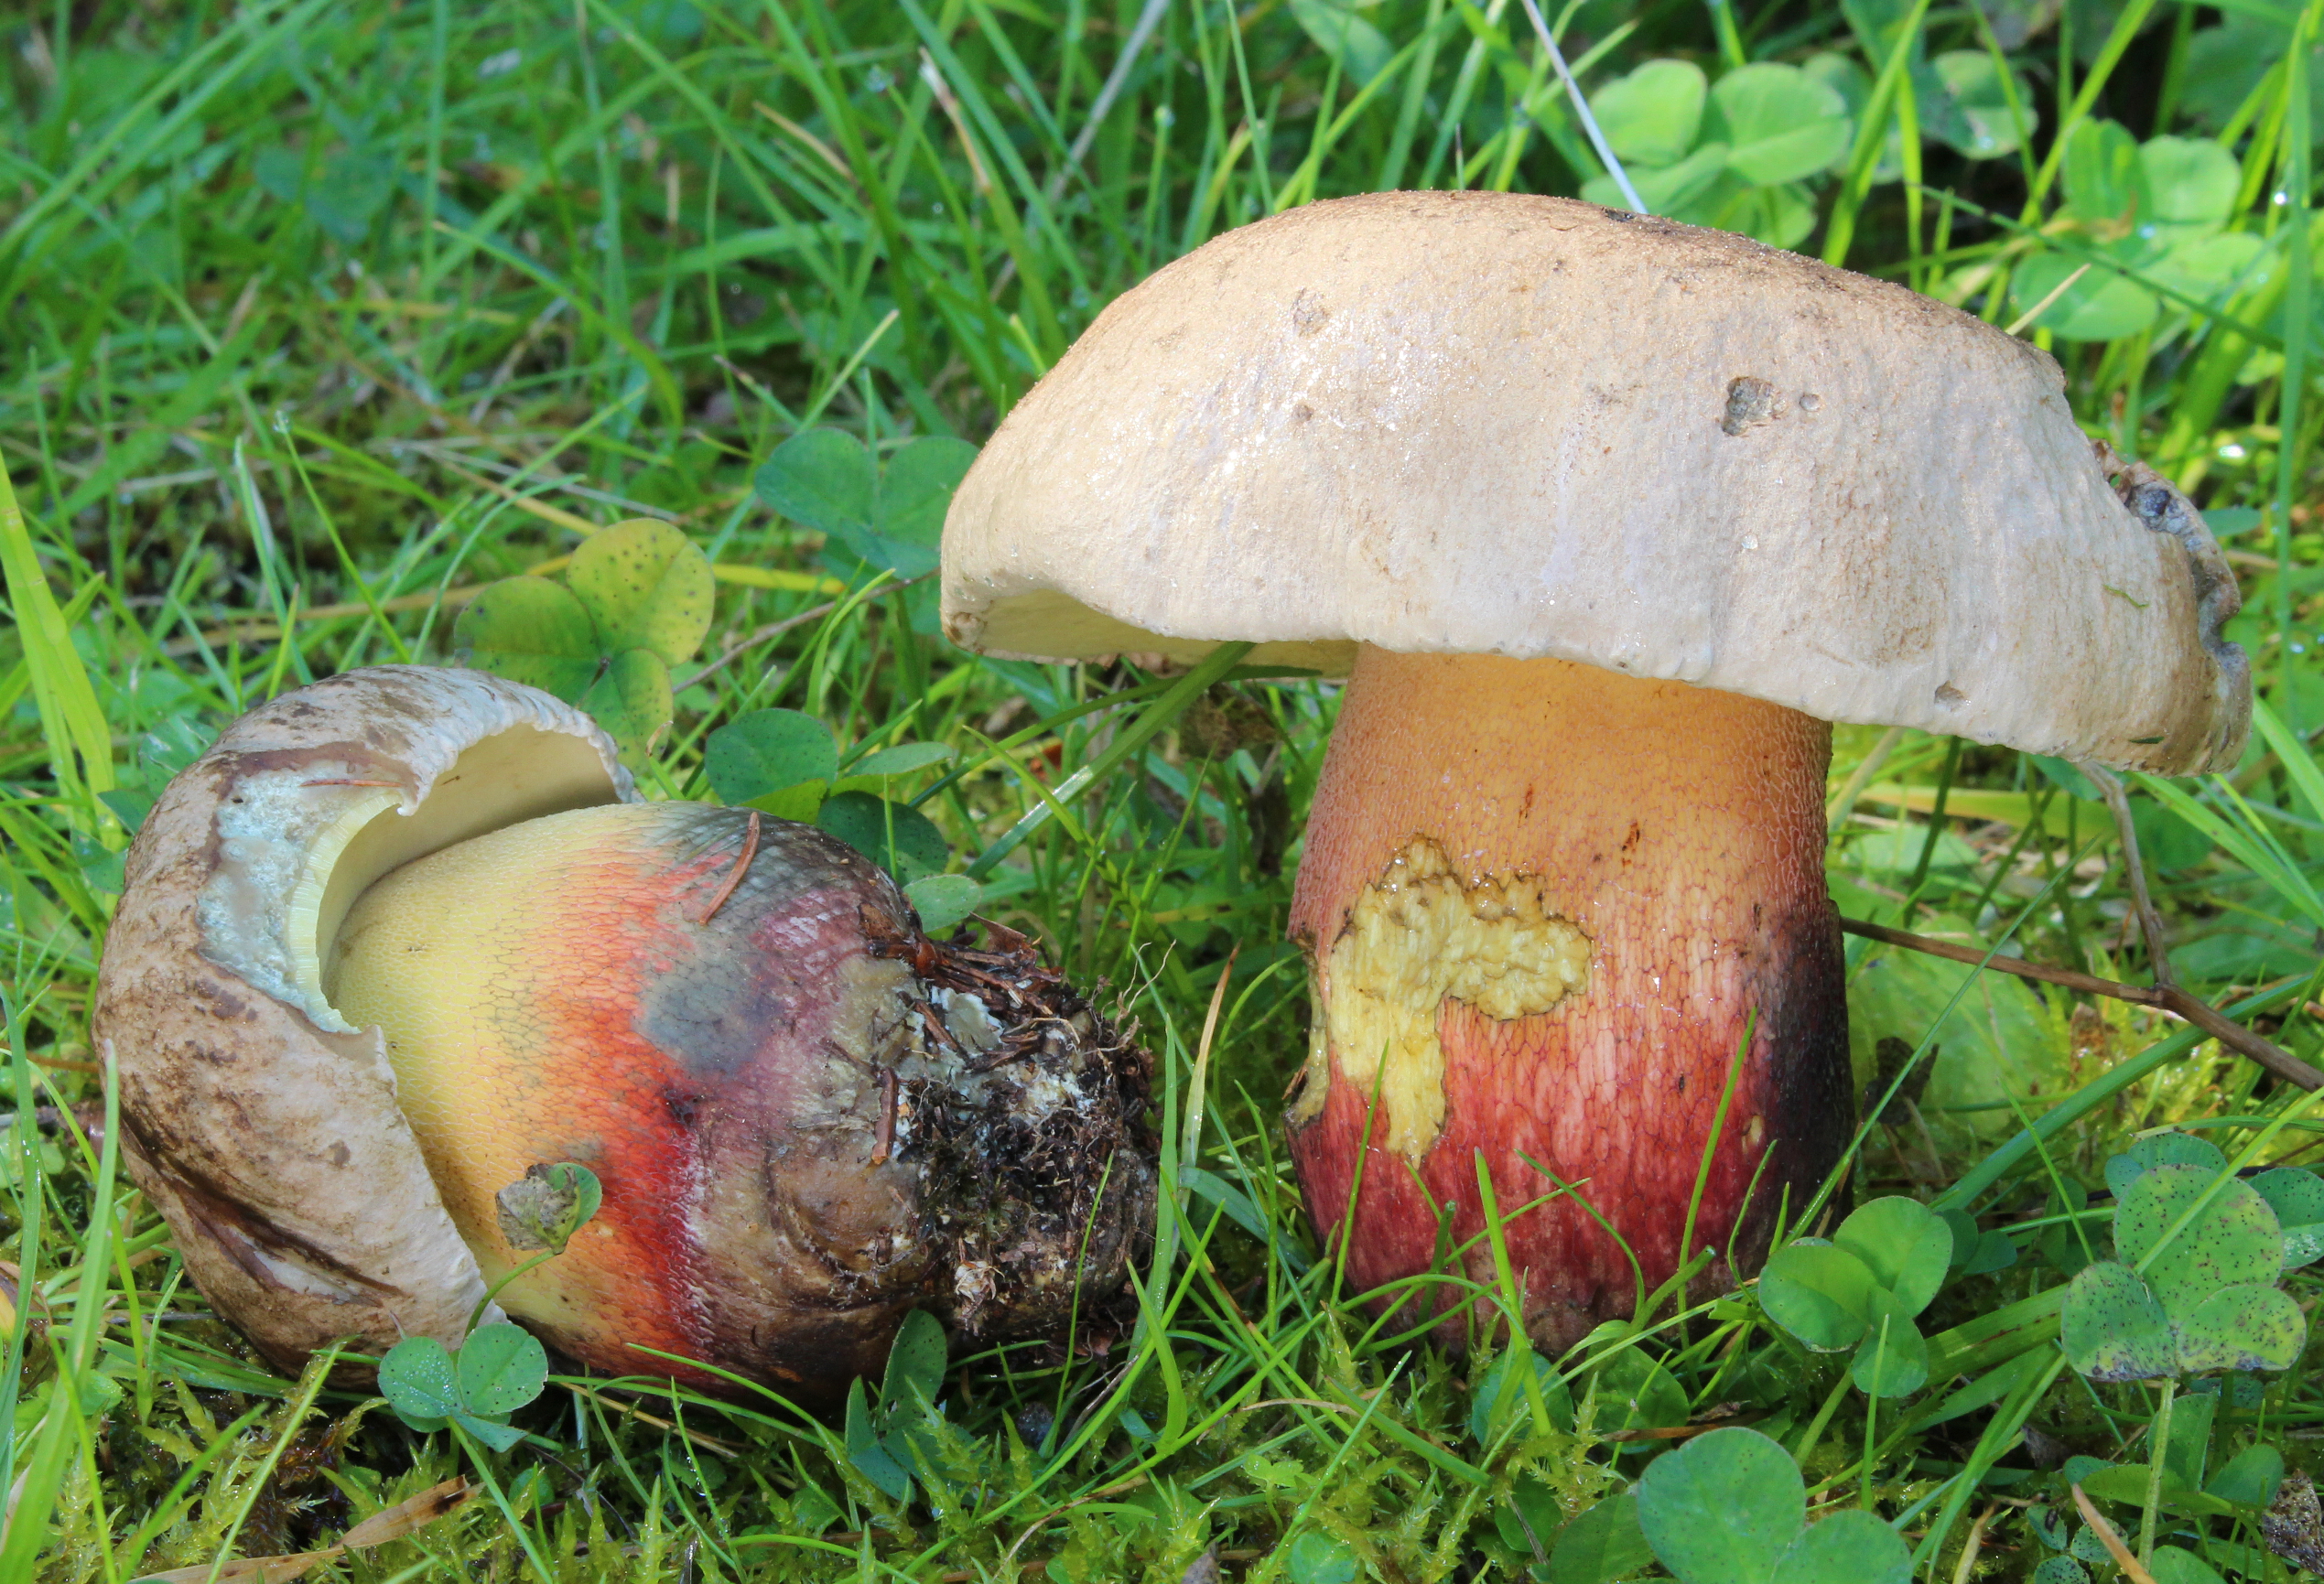
Supainiojimas su tikriniu baravyku (Boletus edulis) gamtoje galimas daugiausia tik paviršutiniškai pažvelgus iš viršaus į jaunus vaisiakūnius. Tikrinis baravykas išsiskiria ruda kepurėle, vamzdeliais nuo baltų iki geltonai žalių, kurie paspaudus nemėlynuoja, šviesiu kotu be ryškiai raudonos spalvos pėdsakų ir švelniu, maloniu skoniu.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Nuotraukos šaltinis · CC BY-SA 4.0Imleria badia
Svarbiausi skirtumai
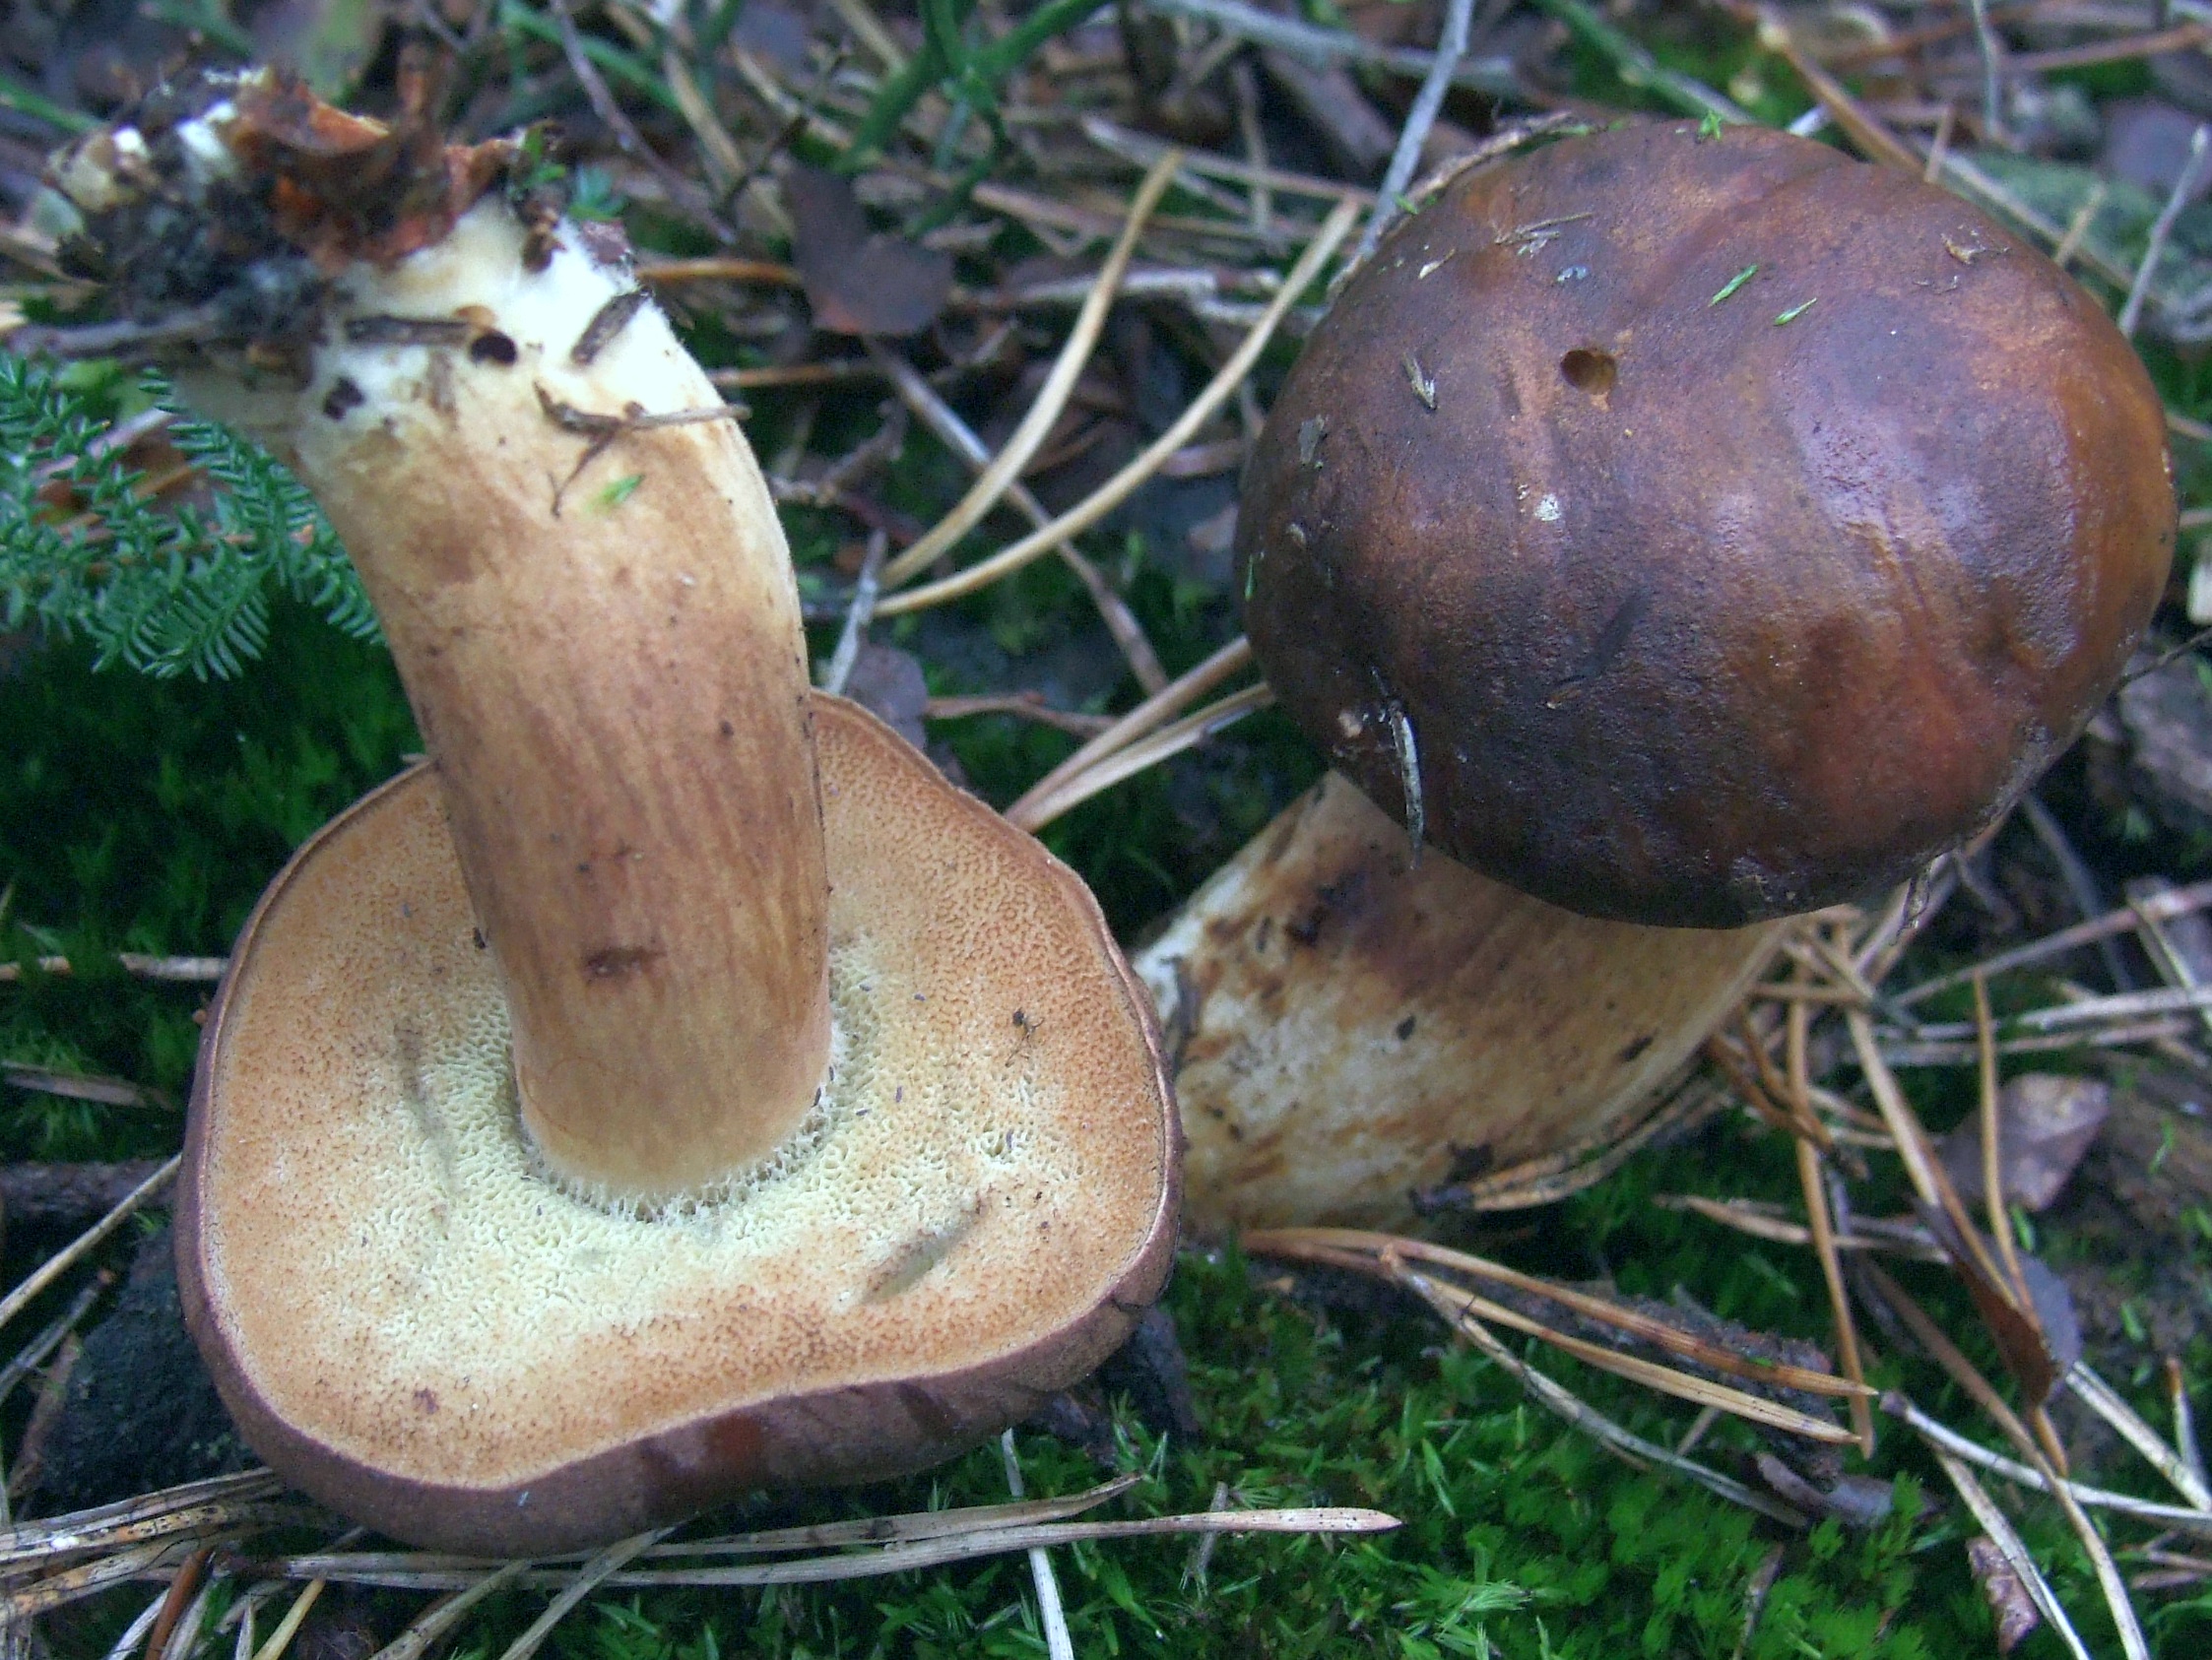
Rudakepuris aksombaravykis (Imleria badia) ir tikrinis baravykas (Boletus edulis) yra populiarūs valgomi grybai. Tikrinis baravykas turi kotą su šviesiu tinkleliu ir poras, kurios iš pradžių būna baltos, o su amžiumi – nuo geltonų iki geltonai alyvinių, kurios paspaudus nekeičia spalvos. Jo trama perpjovus lieka balta. Rudakepurio aksombaravykio kotas yra rusvas, be tinklelio, o poros paspaudus aiškiai mėlynuoja. Aksombaravykio trama perpjovus pamėlynuoja, ypač kepurėlėje ir virš vamzdelių.
FAQ
Ar tikrinis baravykas mėlynuoja perpjautas?
Ne. Tikrinio baravyko trama perpjovus nekeičia spalvos – nemėlynuoja ir netamsėja kontaktuodama su oru. Spalvos nepakitimas pjūvyje yra svarbus diagnostinis požymis.
Ar baravyko kepurėlė gali būti slidi?
Taip. Drėgnu oru kepurėlė būna slidi, lipni arba gleivėta ir blizganti, o jaunų vaisiakūnių – šiek tiek lipni. Pats kepurėlės paviršius būna lygus arba raukšlėtas.
Ar kiekvienas tikrinis baravykas turi tamsiai rudą kepurėlę?
Ne. Kepurėlės spalva būna kintama: nuo šviesiai rudos per riešutinę iki tamsiai rudos ir raudonai rudos. Plačioje rūšies sampratoje atsižvelgiama ir į dar šviesesnio nuspalvinimo formas.
Ar tikrasis baravykas ir tikrinis baravykas yra tas pats?
Tikrasis baravykas yra šnekamasis tikrinio baravyko pavadinimas, tačiau bendrinėje kalboje jis kartais vartojamas ir kelioms panašioms baravykų rūšims, kurias renka grybautojai, apibūdinti.
Kodėl baravyko poros būna tai baltos, tai geltonai alyvinės?
Tai priklauso nuo vaisiakūnio brandos. Jaunų grybų poros yra baltos, o subrendusių tampa geltonos iki geltonai alyvinių. Senstant smulkios, apskritos poros be to tampa kampuotos.
Ar džiovinimas sustiprina baravyko kvapą?
Taip. Švieži vaisiakūniai turi silpną grybų kvapą, o džiovinimas pastebimai sustiprina aromatą. Džiovintas baravykas kvepia gerokai stipriau ir yra tradicinis lenkiškų sriubų bei virtinių ingredientas.
Kokio dydžio gali būti tikrinio baravyko kepurėlė?
Lenkų šaltiniuose Snowarskis nurodo 60–250 mm skersmenį, o čekas Tejkalas – 50–250 mm. Savo ruožtu Muñozo ir Korhoneno darbuose nurodoma, kad tikrinio baravyko kepurėlės pasiekia iki 300 mm (30 cm).
Kaip atskirti tikrinį baravyką nuo aitriojo baravykūno?
Aitrusis baravykūnas turi tamsų, storą tinklelį ant koto ir rausvo atspalvio subrendusias poras. Baravyko tinklelis yra smulkus, balkšvas arba šviesiai rudas, o subrendusios poros – geltonos iki geltonai alyvinių.
Kada galima rasti tikrinį baravyką?
Tai priklauso nuo regioninio požiūrio. Lenkų šaltiniuose augimo laikotarpis apibūdinamas kaip vasara ir ruduo, o Čekijoje grybas dera pasikartojančiu laikotarpiu nuo birželio iki spalio.
Po kokiais medžiais auga tikrinis baravykas?
Tikrinis baravykas auga spygliuočių, lapuočių ir mišriuose miškuose. Sudaro mikorizinius ryšius su įvairiais medžiais: šaltiniuose minimi eglė, kėnis, pušis, bukas ir beržas.
Mėgėjas
Kepurėlės apačia
- Vamzdelių ilgis
- Vamzdelių ilgis: 5–30 mm.
Pavadinimai ir istorija
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Stebėjimai namuose
Sporų atspaudas
- Reikalingos medžiagos
- šviežia, subrendusi kepurėlė, popieriaus lapas, stiklinė arba dubenėlis, vanduo
- Laikas
- 2–24 h
- Atlikimas
- Padėkite kepurėlę apatine puse ant popieriaus.
- Užlašinkite lašą vandens ant viršaus ir uždenkite.
- Po 2–24 valandų pakelkite kepurėlę ir apžiūrėkite nuosėdas.
Ko ieškoti
- Sporų atspaudo spalva
- Sporų atspaudo spalva: rudas. Sporų atspaudo spalva: žalias.
- Sporų atspaudo atspalvis
- Sporų atspaudo atspalvis: tamsiai alyviškai ruda. Sporų atspaudo atspalvis: rudai alyvinis.
Po mikroskopu
- Reikalingos medžiagos
- šviesinis mikroskopas, objektinis ir dengiamasis stikleliai, adata, vanduo, sporos iš atspaudo
- Atlikimas
- Adata perkelkite šiek tiek atspaudo ant stiklelio.
- Užlašinkite lašą vandens, uždenkite dengiamuoju stikleliu ir apžiūrėkite sporas.
Ko ieškoti
- Sporos forma
- Sporos forma: verpstiškas. Sporos forma: pailgai elipsoidinis. Sporos forma: verpstiškas. Sporos forma: verpstiškas. Sporos forma: elipsoidiškas.
- Sporos paviršius
- Sporos paviršius: lygus. Sporos paviršius: lygus. Sporos paviršius: lygus.
- Sporos matmenys
- Ilgis 12–19,5 µm, plotis 4–7 µm.
Matmenis lyginkite sukalibravę mikroskopo skalę.
Ekologija ir paplitimas
- Dirvožemio reakcija
- Dirvožemio reakcija: rūgštus.
- Dirvožemio kalkingumas
- Dirvožemio kalkingumas: nekalkinga.
- Mikorizės partneriai
- Bendras rūšies ryšys: Mikorizės partneriai: Picea (bendras partnerių sąrašas).
Bendras rūšies ryšys: Mikorizės partneriai: Abies (bendras partnerių sąrašas).
Bendras rūšies ryšys: Mikorizės partneriai: Pinus (bendras partnerių sąrašas).
Bendras rūšies ryšys: Mikorizės partneriai: Fagus (bendras partnerių sąrašas).
Bendras rūšies ryšys: Mikorizės partneriai: Betula (bendras partnerių sąrašas).
Bendras rūšies ryšys: Mikorizės partneriai: Picea abies (bendras partnerių sąrašas).
Panaudojimas ne kulinarijoje
Dėl tikrinio baravyko nepakulinarijų pritaikymų mokslo šaltiniuose (be kita ko, publikacijoje žurnale IMA Fungus, doi:10.1186/s43008-024-00156-7) fiksuojami negausūs, vietiniai etnologiniai-mikologiniai pranešimai. Lauko tyrimuose apie tradicines žinias apie grybus dokumentuotas pasakojimas, susijęs su liaudiška šios rūšies vaisiakūnių vietinio naudojimo praktika esant odos ligoms.
Šis įrašas yra tik užfiksuoto etnologinio pasakojimo aprašymas ir vietinio vaistažolių folkloro elementas, be mokslinio biologinio veiksmingumo ar gydomojo poveikio patvirtinimo. Šiuolaikinė mikologinė ir etnobiologinė literatūra šią užuominą vertina tik kaip senųjų papročių liudijimą, neformuluodama jokių terapinių, medicininių rekomendacijų ar naudojimo receptų. Bet koks nekulinariškas tikrinio baravyko panaudojimas buvo marginalaus ir istorinio pobūdžio, palyginti su jo visuotine maistine paskirtimi.
Istorija ir kultūra
Tikrinis baravykas užima fundamentalią vietą Europos kultūroje ir miško tradicijose, būdamas visuotinai pripažintas prestižiškiausiu grybu rinkimo tradicijose. Mokslinės mikologijos istorijoje esminis momentas buvo formalus rūšies aprašymas ir rūšinio pavadinimo Boletus edulis suteikimas, kurį 1782 metais atliko prancūzų gamtininkas Jean-Baptiste Bulliard.
Lenkų literatūros tradicijoje baravyko motyvas buvo įamžintas Adomo Mickevičiaus epo „Ponas Tadas“ III knygoje („Piršlybos“), kur grybavimo aprašyme atsiranda užuomina apie baravyką, dainoje vadinamą „grybų pulkininku“. Tačiau šios nuorodos nereikėtų tiesiogiai tapatinti su šiuolaikine, griežta taksonomine rūšies samprata, bet su senuoju, kultūriniu kilniųjų miško grybų suvokimu.
Šio grybo reikšmę Vidurio ir Rytų Europos liaudies kultūroje patvirtina šiuolaikiniai etnobiologiniai tyrimai, be kita ko, tradicijų analizės, atliktos Ukrainos ir Rumunijos pasienyje. Jie rodo išskirtinį žinių apie baravyką tvarumą vietos bendruomenių kolektyvinėje atmintyje. Šis grybas taip pat turi stiprią šventinę bei apeiginę simboliką, būdamas tradicinis Kūčių vakarienės elementas kaip ryšio su gamta simbolis.
Valgomumas ir saugumas
Tikrinis baravykas yra visuotinai vertinamas valgomasis grybas, pasižymintis švelniu, riešutiniu skoniu bei išraiškingu, miško aromatu, kuris džiovinant sustiprėja. Vartojimo tikslams renkami sveiki, švieži vaisiakūniai. Senų, pernokusių ar pelėsių pažeistų vaisiakūnių vartojimas gali sukelti nespecifinius apsinuodijimus, kuriuos sukelia audinių irimo procesai. Standartinė paruošimo vartojimui praktika yra terminis grybo apdorojimas (virimas, troškinimas, kepimas), o džiovinimas yra jo konservavimo metodas.
Vartojimo tradicijos pasižymi regioniniais skirtumais. Lenkijoje ir Vidurio bei Rytų Europoje tikrinis baravykas yra pagrindinė grybų žaliava, tradiciškai džiovinama ir marinuojama. Italijoje, kur jis žinomas kaip porcino, yra tradicinis troškintų ir keptų patiekalų ingredientas. Prancūzijoje, vadinamas cèpe, plačiai naudojamas regioninėje gastronomijoje, o Vakarų Europos virtuvėse jo populiarumas išaugo veikiant žemyno pietų kulinarinėms tradicijoms.
Buveinė ir paplitimas
Tikrinis baravykas aptinkamas šiaurės pusrutulio vidutinio ir borealinio klimato juostoje, augdamas spygliuočių, lapuočių ir mišriuose miškuose. Kaip ektomikorizinis grybas sudaro ryšius su daugeliu miško medžių rūšių. Remiantis taksonominiais-ekologiniais tyrimais, prie pagrindinių jo mikorizinių partnerių priskiriami spygliuočiai medžiai, įskaitant eglę (Picea), pušį (Pinus) ir kėnį (Abies), bei lapuočiai medžiai, visų pirma ąžuolas (Quercus), bukas (Fagus), beržas (Betula) ir kaštainis (Castanea).
Rūšis įsikuria įvairių tipų miško dirvožemiuose, dažniausiai rūgščios reakcijos, įskaitant smėlingus, smėlingo molio ir humusingus substratus, neretai žolinėje dangoje su samanomis ir mėlynėmis / uogienojais. Aptinkamas tiek žemumose, tiek kalvotose ir kalnuotose vietovėse.
Suvestinėse dokumentuoti vaisiakūnių stebėjimų laikotarpiai Vidurio Europoje apima Lenkijoje laikotarpį nuo birželio iki lapkričio (VI–XI), o Čekijoje – nuo birželio iki spalio (VI–X). Šie laikotarpiai nustato vaisiakūnių fiksavimo gamtoje laiko ribas priklausomai nuo oro sąlygų, be nepagrįsto mėnesinių piko taškų išskyrimo ar regioninių paplitimo dažnumo palyginimų.
Tyrėjas
Valgomumas ir virtuvė
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Valgomumas
- Valgomas — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Kulinarinis įvertinimas
- Labai skanus
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Prekyba
- Leidžiamas prekybai
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Moksliniai pavadinimai ir taksonomija
- Galiojantis mokslinis pavadinimas
Boletus edulis Bull.
- Ankstesni moksliniai pavadinimai
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Taksono apimtis ir atpažinimo ribos
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Ekologija ir paplitimas
Laboratorinė diagnostika
Dane ustrukturyzowane
Papėdgrūdžiai
Kaulocistidės
Kepurėlės odelė
Reakcijos su reagentais
- Amiloidinė reakcija
- Amiloidinė reakcija: neigiamas. [14]
Sporos
- Sporų spalva pro mikroskopą
- Sporų spalva pro mikroskopą: gelsvai ruda. [20]
- Lašeliai sporos viduje
- Lašeliai sporos viduje: yra. [21]
- Sporos ilgis
- Sporos ilgis: 16–19 µm. [20]
Sporos ilgis: 12–18 µm. [17]
Sporos ilgis: 12–19,5 µm. [14]
Sporos ilgis: 14–18 µm. [24]
Sporos ilgis: 13–16,5 µm. [21] - Sporos ilgio ir pločio santykis
- Sporos ilgio ir pločio santykis: 2,5–3,9. [14]
Sporos ilgio ir pločio santykis: 2,8–3,6. [21]
Sporos ilgio ir pločio santykis: 2,7–3,4. [20] - Sporos forma
- Sporos forma: verpstiškas. [24]
Sporos forma: pailgai elipsoidinis. [17]
Sporos forma: verpstiškas. [17]
Sporos forma: verpstiškas. [21]
Sporos forma: elipsoidiškas. [21]
Sporos forma: verpstiškas. [20] - Sporos paviršius
- Sporos paviršius: lygus. [24]
Sporos paviršius: lygus. [17]
Sporos paviršius: lygus. [21]
Sporos paviršius: lygus. [20] - Sporos sienelės storis
- Sporos sienelės storis: storasienis. [20]
Tyrimų medžiaga ir metodai
- Šaltiniuose pateikti rezultatai — Kepurėlės odelės galinės ląstelės ilgis
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Šaltiniuose pateikti rezultatai — Kepurėlės odelės galinės ląstelės plotis
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Šaltiniuose pateikti rezultatai — Sporos ilgis
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Šaltiniuose pateikti rezultatai — Sporos ilgio ir pločio santykis
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Šaltiniuose pateikti rezultatai — Sporos plotis
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Paplitimo patikra — apimtis ir apribojimai
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Medžiagos paruošimas mikroskopijai
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Apžvalgos apimtis
Prieš užbaigiant įrašą reikia papildyti arba suderinti.
- Paplitimo regionų paieška reikalauja suderinimo.
- Ankstesnių išvadų sąsajas reikia patikrinti iš naujo.
- Naujiems šaltiniams reikia suderinti peržiūros metu rastą informaciją.
Teisinis pagrindas ir vertinimo apimtis
Svarbiausios medžiagos ir jų poveikis
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Buveinė ir paplitimas
Buveinė, regionas ir sezonas
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Šaltiniai |
|---|---|---|---|
| Čekija | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Lenkija | Žemutinė Silezija — šaltinio įvardyta apimtis | VI–XI |
|
Šaltiniai
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis