
Ядомы

Дазволены да абароту
Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


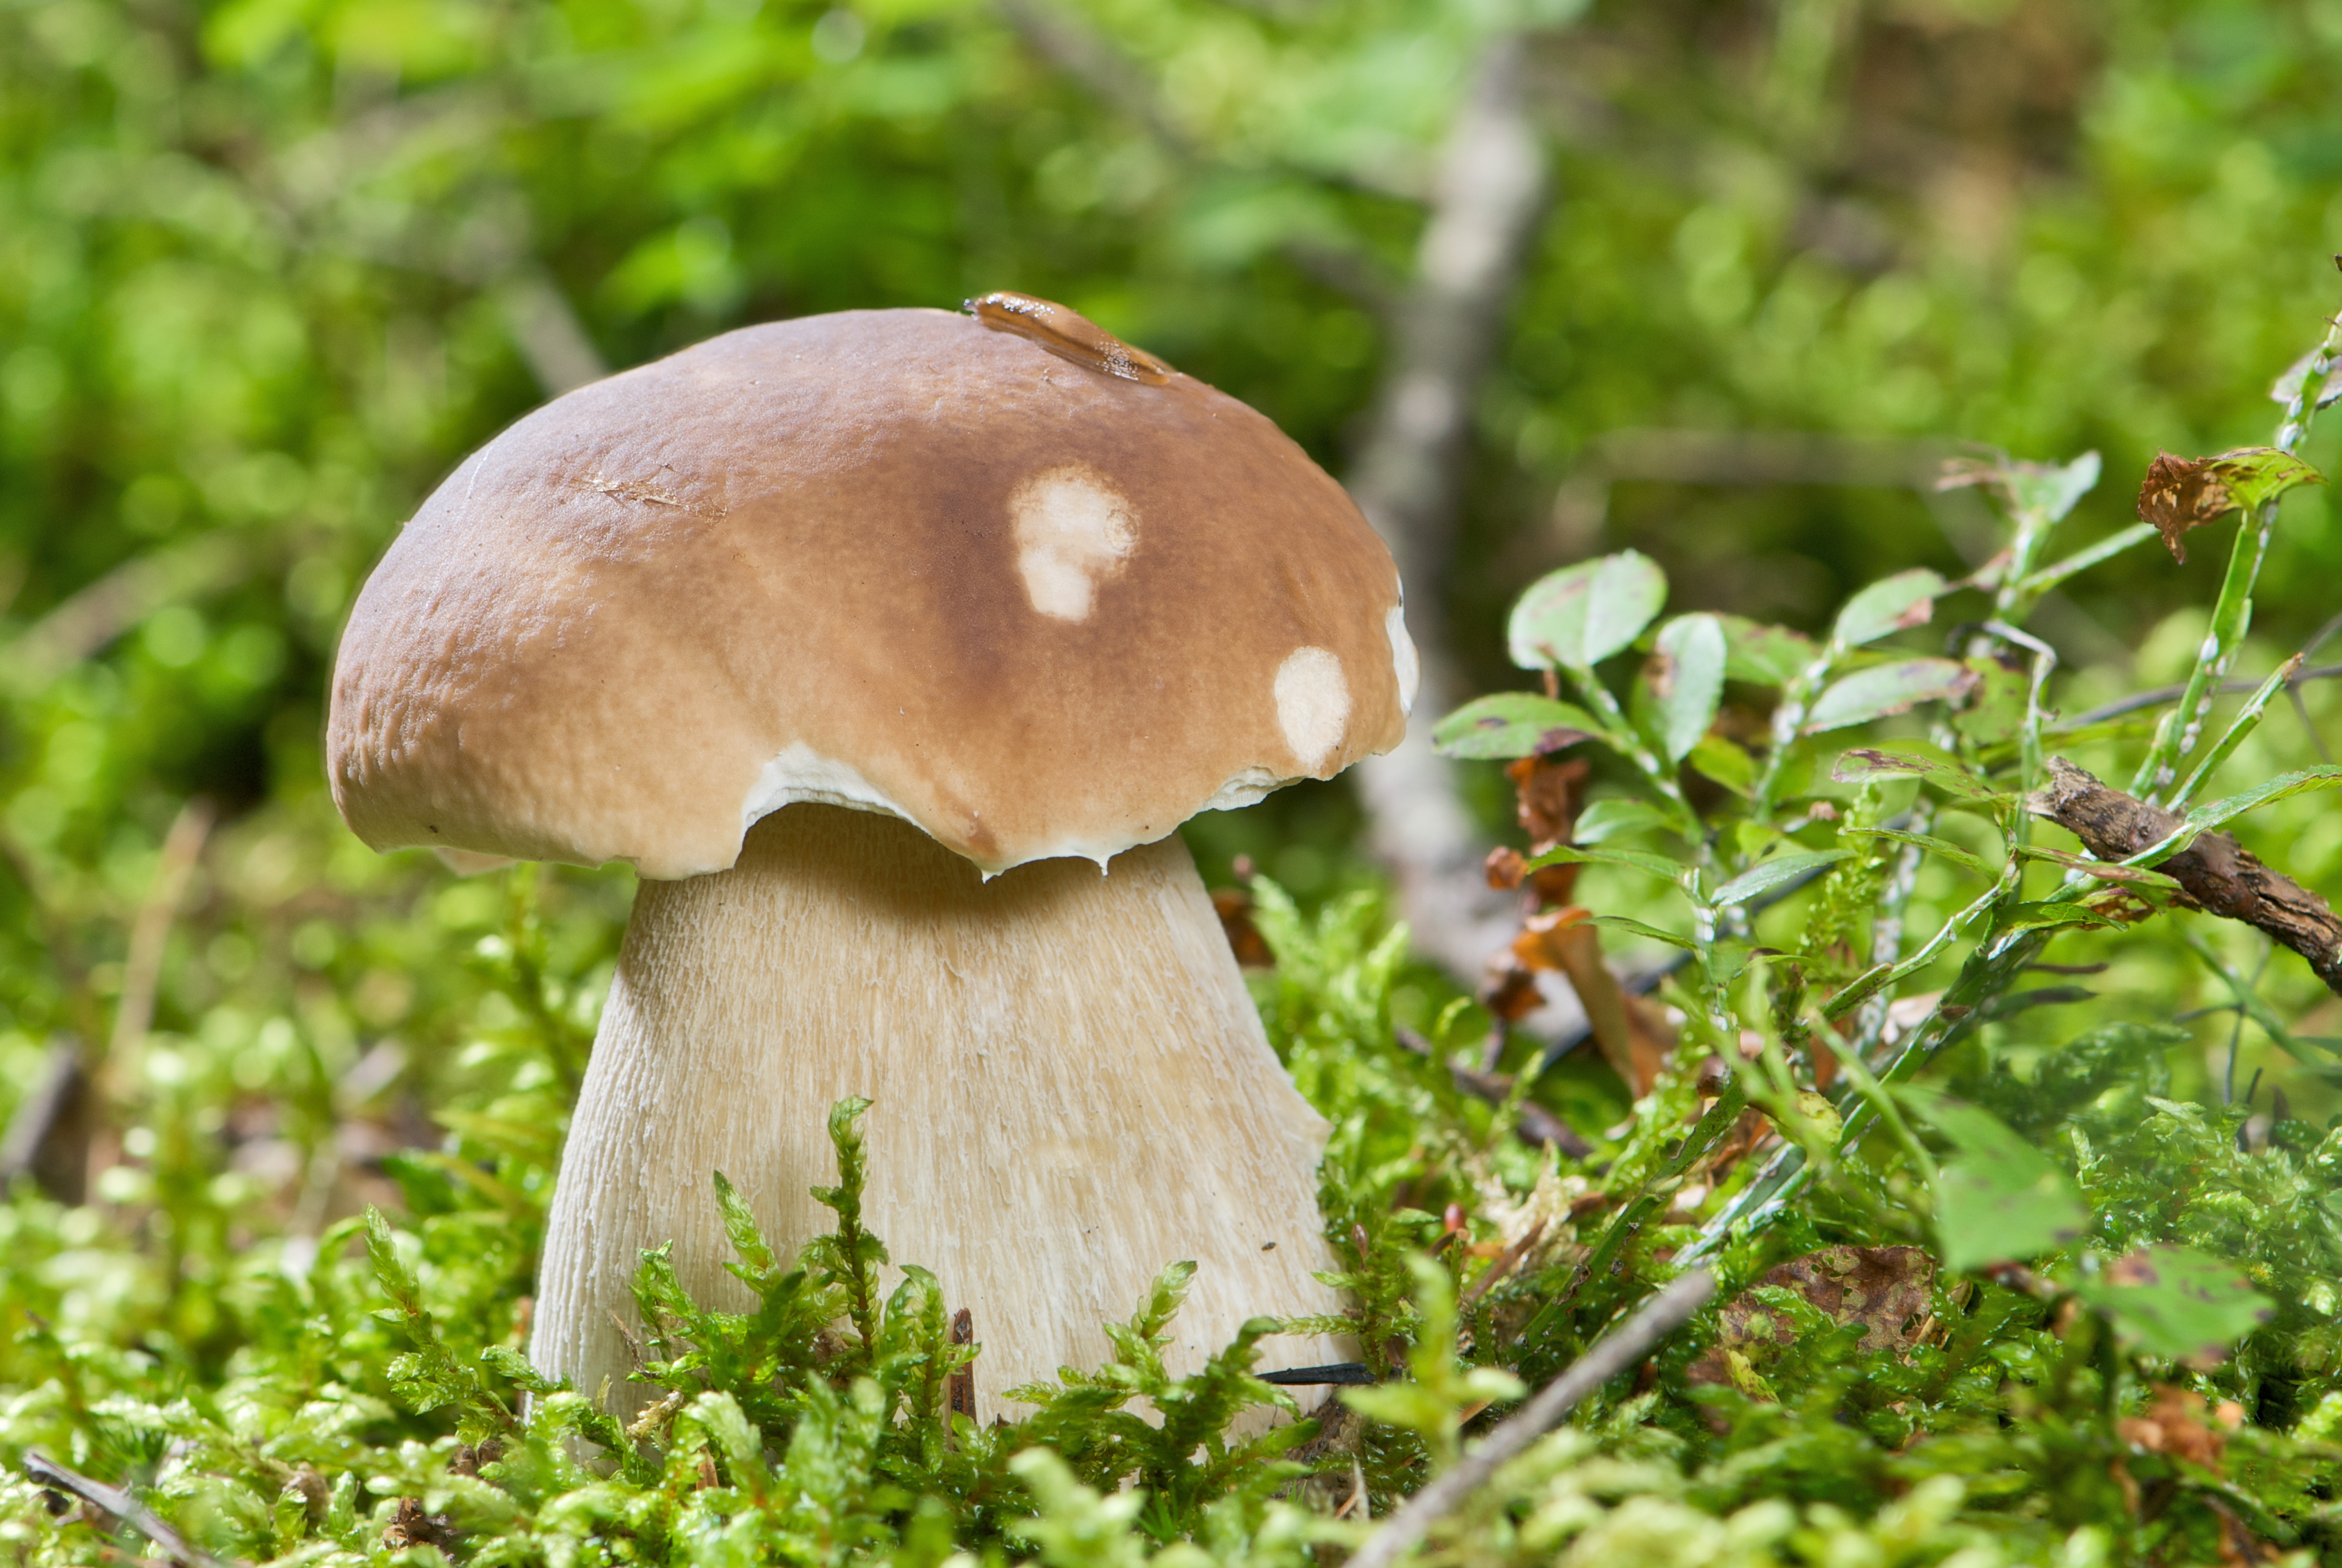


Баравік высакародны (Boletus edulis) — гэта каштоўны ядомы грыб, які сустракаецца ў іглічных, лісцевых і мяшаных лясах на кіслых глебах. Ён утварае плодавыя целы з мясістай карычневай шапкай і ножкай, пакрытай дробнай бялявай або светла-карычневай сетачкай. Поры трубачак у маладых грыбоў белыя, а ў спелых змяняюць колер на жоўты да жоўта-аліўкавага. Белая мякаць не змяняе колеру пасля разрэзвання. Гэты від утварае мікарызу з рознымі дрэвамі, у тым ліку са елкай, піхтай, сасной, букам і бярозай.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у спелых пладовых цел: Форма капялюшыка: плоскі. - Рэльеф паверхні капялюшыка
- Рэльеф паверхні капялюшыка: гладкі.
Рэльеф паверхні капялюшыка: зморшчаны. - Покрыва капялюшыка
- Покрыва капялюшыка: голая.
- Бляск паверхні капялюшыка
- у мокрым стане: Бляск паверхні капялюшыка: бліскучы.
- Ліпкасць і слізістасць капялюшыка
- у мокрым стане: Ліпкасць і слізістасць капялюшыка: ліпкі.
у мокрым стане: Ліпкасць і слізістасць капялюшыка: слізісты. - Колер капялюшыка
- Колер капялюшыка: бежавы.
Колер капялюшыка: карычневы.
Колер капялюшыка: цёмна-карычневы.
у спелых пладовых цел: Колер капялюшыка: цёмна-карычневы.
у маладых пладовых цел: Колер капялюшыка: светла-карычневы.
Колер капялюшыка: светла-карычневы.
Колер капялюшыка: светла-вохрысты.
Колер капялюшыка: вохрыста-карычневы.
у спелых пладовых цел: Колер капялюшыка: чырвона-карычневы.
Колер капялюшыка: белы (на краі капялюшыка). - Дыяметр капялюшыка
- Дыяметр капялюшыка складае 50–300 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
Трубачкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (трубачкі).
- Профіль гіменафора каля ножкі
- Профіль гіменафора каля ножкі: выемчаты каля ножкі (трубачкі).
- Аддзяляльнасць гіменафора ад капялюшыка
- Аддзяляльнасць гіменафора ад капялюшыка: лёгка аддзяляецца (трубачкі).
- Форма пор
- у маладых пладовых цел: Форма пор: круглы.
у спелых пладовых цел: Форма пор: вуглаватыя. - Колер пор пасля пашкоджання
- Колер пор пасля пашкоджання: без змены колеру.
Колер пор пасля пашкоджання: без змены колеру. - Колер трубачак пасля пашкоджання
- Колер трубачак пасля пашкоджання: без змены колеру.
- Натуральны колер пор
- у маладых пладовых цел: Натуральны колер пор: белы.
у спелых пладовых цел: Натуральны колер пор: жоўты.
у спелых пладовых цел: Натуральны колер пор: жоўта-аліўкавы.
у спелых пладовых цел: Натуральны колер пор: аліўкава-зялёна-жоўтая.
у маладых пладовых цел: Натуральны колер пор: белаватая.
у спелых пладовых цел: Натуральны колер пор: жоўта-зялёны. - Натуральны колер трубачак
- у спелых пладовых цел: Натуральны колер трубачак: крэмавы.
у спелых пладовых цел: Натуральны колер трубачак: бледна-жоўты.
у маладых пладовых цел: Натуральны колер трубачак: белы.
у спелых пладовых цел: Натуральны колер трубачак: жоўта-аліўкавы.
у спелых пладовых цел: Натуральны колер трубачак: аліўкава-зялёна-жоўтая.
у маладых пладовых цел: Натуральны колер трубачак: белаватая.
у спелых пладовых цел: Натуральны колер трубачак: жоўты.
у спелых пладовых цел: Натуральны колер трубачак: жоўта-зялёны.
Ножка і аснова
- Форма ножкі
- у маладых пладовых цел: Форма ножкі: бочкападобны.
у спелых пладовых цел: Форма ножкі: булавападобны.
Форма ножкі: цыліндрычны.
Форма ножкі: булавападобны.
Форма ножкі: звужаецца да асновы. - Аснова ножкі
- Аснова ножкі: булавападобная.
Аснова ножкі: патоўшчаная. - Колер ножкі
- Колер ножкі: белаватая.
Колер ножкі: светла-карычневы. - Рэльеф паверхні ножкі
- у верхняй частцы ножкі: Рэльеф паверхні ножкі: сеткаватае.
- Даўжыня ножкі
- Даўжыня ножкі: 20–300 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 15–120 mm.
- Колер сетачкі ножкі
- у верхняй частцы ножкі: Колер сетачкі ножкі: белаватая.
у верхняй частцы ножкі: Колер сетачкі ножкі: светла-карычневы.
у верхняй частцы ножкі: Колер сетачкі ножкі: белы.
Мякаць
- Колер мякаці
- Колер мякаці: белы.
Колер мякаці: чырвона-карычневы (мякаць капялюшыка, пад скуркай).
Колер мякаці: ружаваты (мякаць капялюшыка, пад скуркай).
Колер мякаці: карычняваты (мякаць каля асновы ножкі). - Шчыльнасць мякаці
- у маладых пладовых цел: Шчыльнасць мякаці: шчыльны.
у спелых пладовых цел: Шчыльнасць мякаці: мяккі. - Смак мякаці
- Смак мякаці: слабы.
- Пругкасць мякаці
- у маладых пладовых цел: Пругкасць мякаці: пругкі.
- Структура мякаці
- у спелых пладовых цел: Структура мякаці: ватападобны.
у старых пладовых цел: Структура мякаці: губчаты. - Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: без змены колеру.
Колер мякаці пасля пашкоджання: без змены колеру.
Колер мякаці пасля пашкоджання: без змены колеру. - Пах мякаці
- Пах мякаці: грыбны, слабы.
Пах мякаці: слабы. - Адценне смаку мякаці
- Адценне смаку мякаці: арэхавы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: хвойны лес.
Месцапражыванне: лісцевы лес.
Месцапражыванне: змешаны лес. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: групамі. - Частата знаходак
- Частата знаходак: звычайны.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да лістапада.
- Арэал распаўсюджання
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Кулінарная ацэнка
- Вельмі смачны
Права
Правілы для лакацыі: Польшча
- Ахова
- У Польшчы Boletus edulis не падлягае заканадаўчай відавой ахове.
- Гандаль
- Дазволены да абароту
З чым можна паблытаць
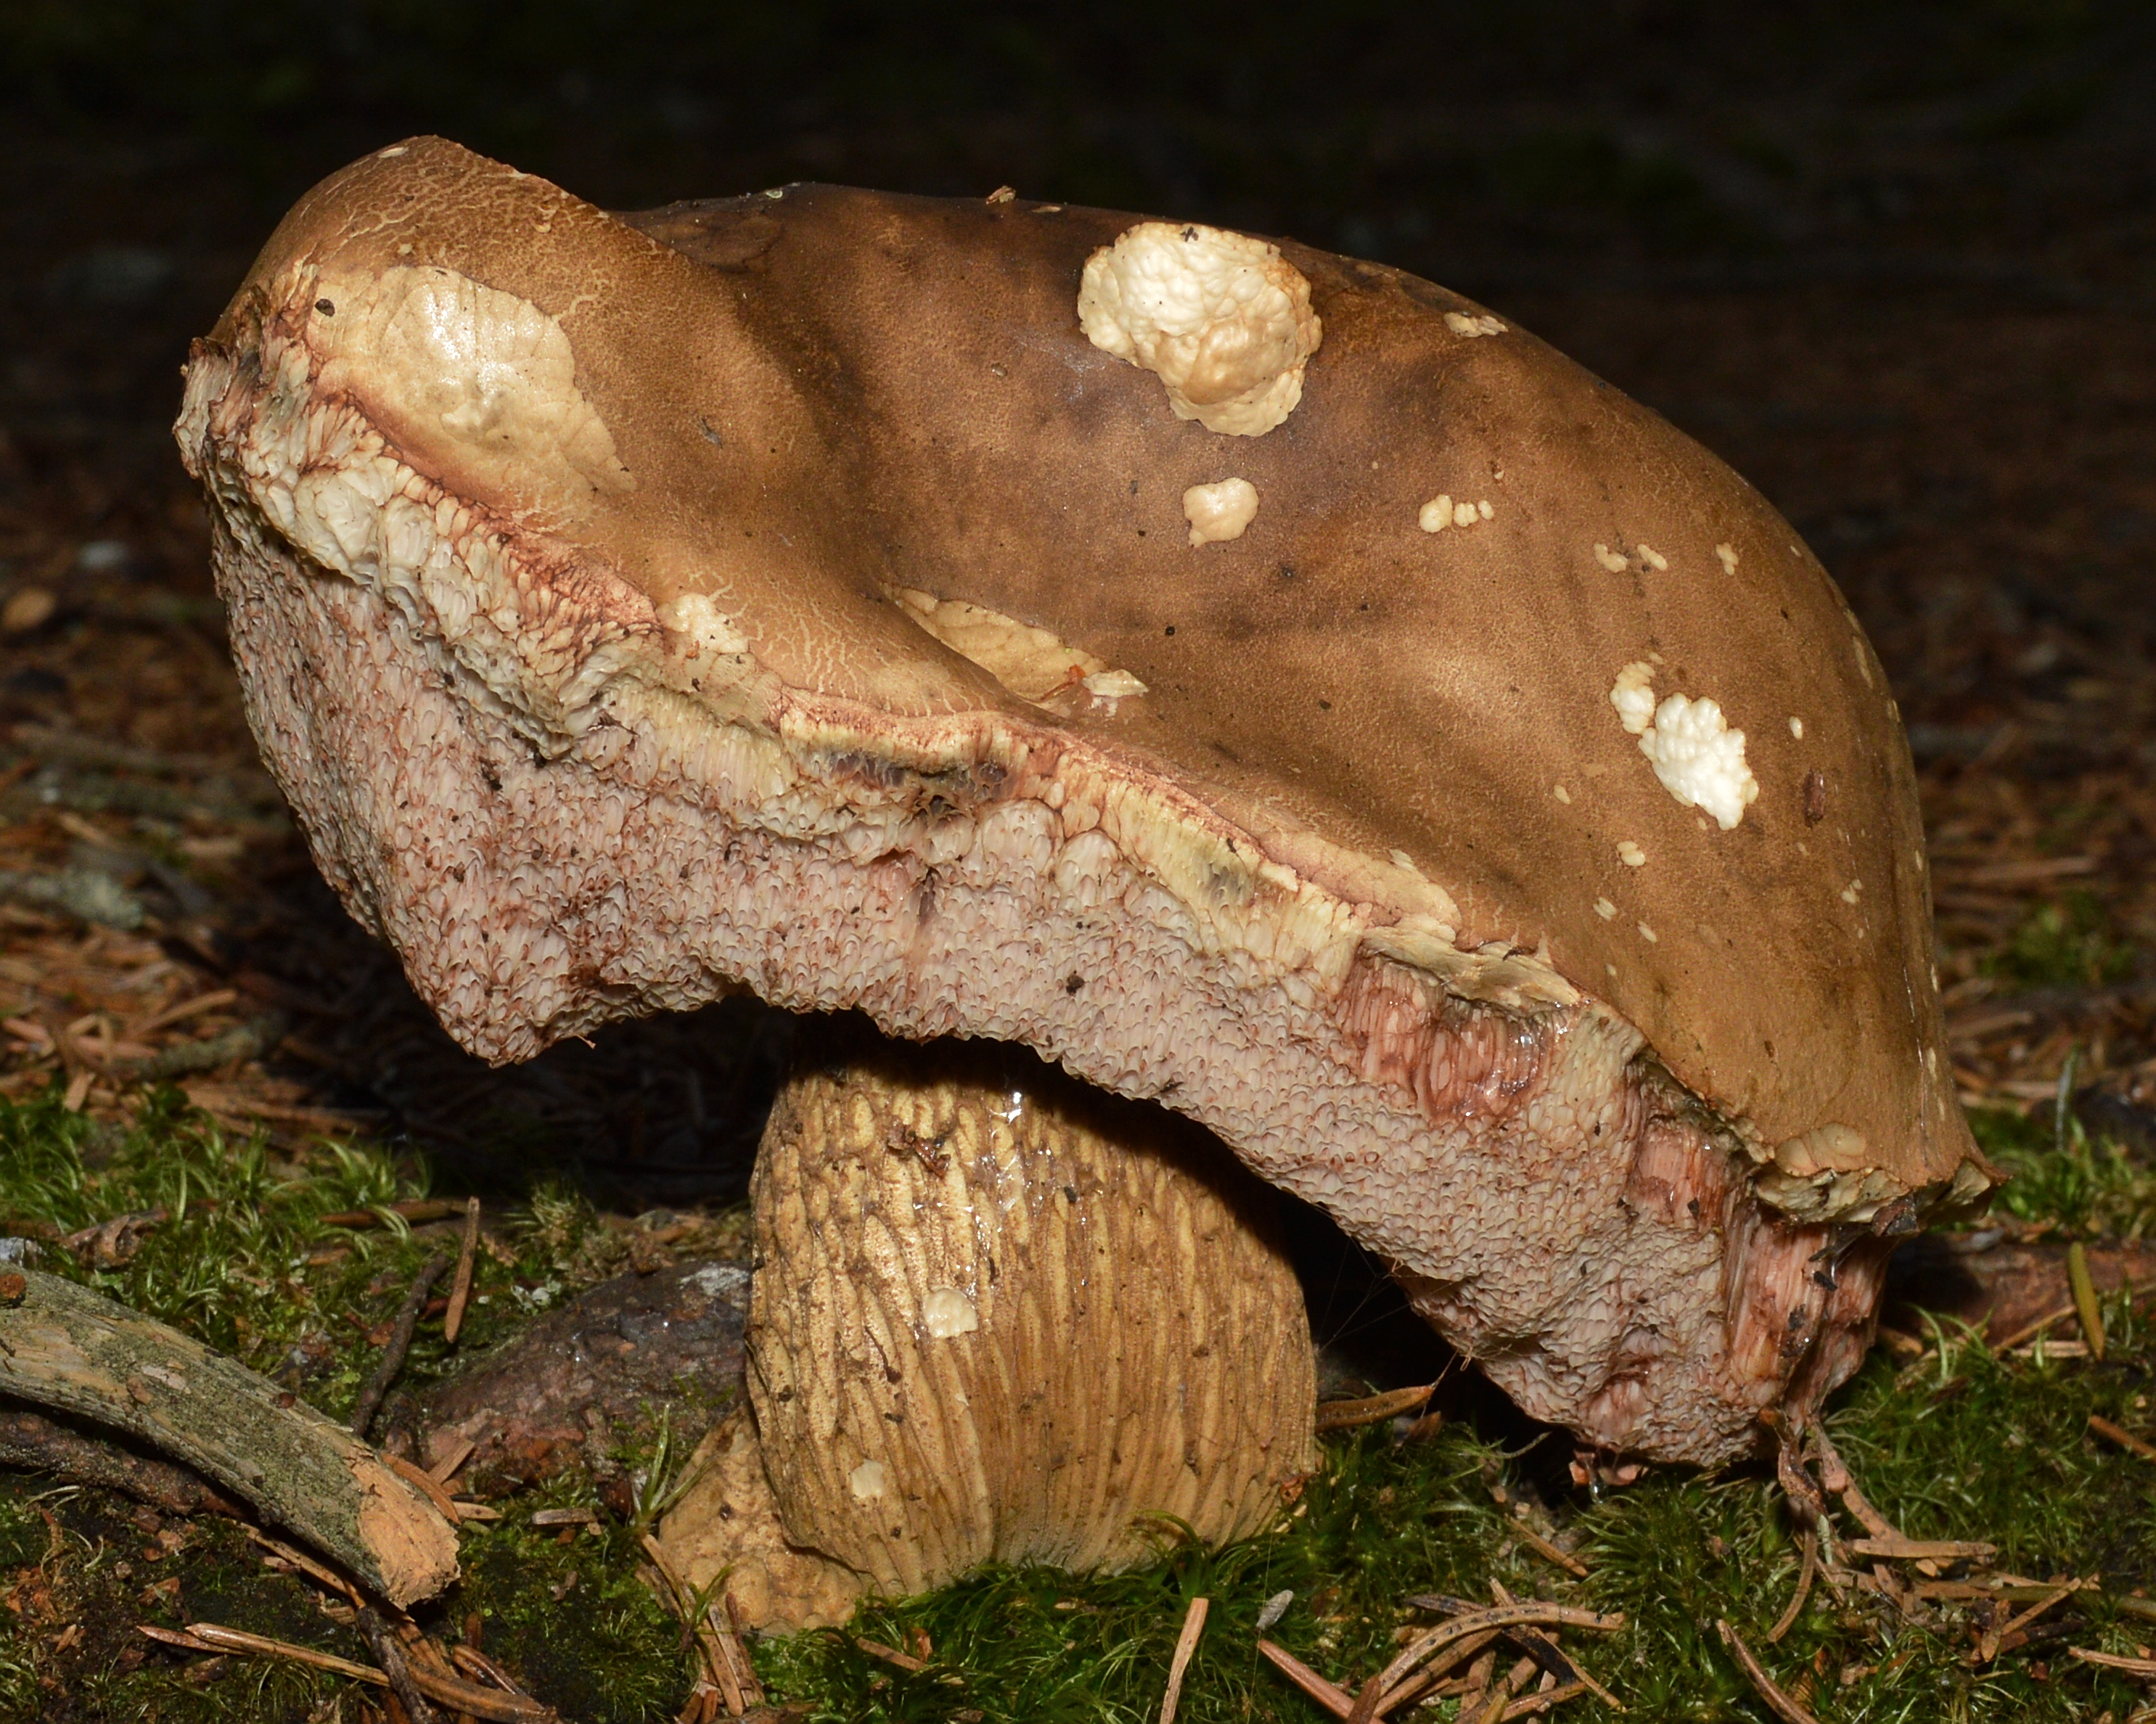
Tylopilus felleus
Асноўныя адрозненні
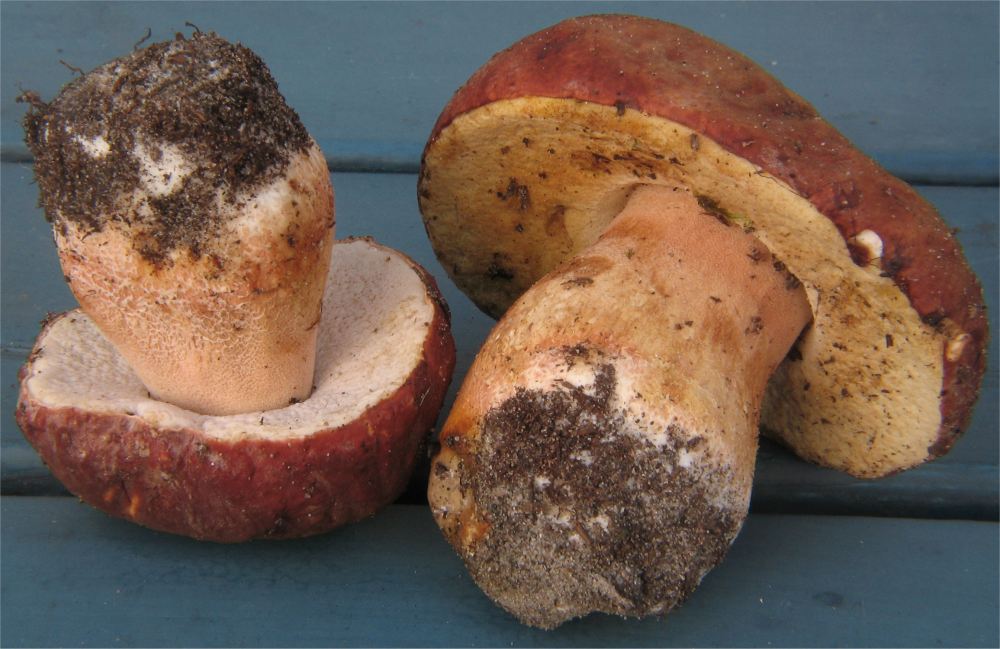
Жоўцевы грыб (Tylopilus felleus) у маладых асобнікаў мае бялявыя поры, з-за чаго яго часам блытаюць з белым грыбам. Аднак па меры выспявання яго поры становяцца брудна-ружовымі, сетачка на ножцы — тоўстай, цёмнай і выпуклай, а шапка застаецца матавай і аксаміцістай. Мякаць жоўцевага грыба вылучаецца інтэнсіўнай гаркатой, якую не выдаляюць ні варка, ні сушка, з-за чаго нават адзінае пладовае цела псуе смак усёй стравы.
Белы грыб (Boletus edulis) нагадвае малады жоўцевы грыб паставай і карычневай шапкай. Аднак ён адрозніваецца святлейшай, першапачаткова белай ножкай, пакрытай далікатнай светлай сетачкай (бачнай пераважна ў яе верхняй частцы). Акрамя таго, трубачкі і поры белага грыба з узростам змяняюць колер з белага на жоўта-зялёны і аліўкава-зялёны, тады як у жоўцевага грыба яны ружавеюць.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Крыніца фота · Public domainBoletus reticulatus
Асноўныя адрозненні
Баравік сеткаваты (Boletus reticulatus) вылучаецца капялюшам з матавай, замшавай або доўга ашэраханай паверхняй, якая падчас засухі часта трэскаецца на дробныя дзялянкі, а таксама выразнай сетачкай, якая часта пакрывае амаль усю ножку. Сустракаецца пераважна пад букамі і дубамі, з'яўляючыся звычайна раней у сезоне, чым баравік высакародны. З-за зменлівасці прыкмет паверхні і распаўсюджанасці сетачкі ў абодвух відаў, сама працягласць вочак на ножцы не заўсёды дазваляе іх адназначна адрозніць.
Баравік высакародны (Boletus edulis) мае звычайна больш гладкую паверхню капелюша, якая ў вільготнае надвор'е становіцца ліпкай і слізістай, а на яго краі часта бачная вузкая, больш светлая аблямоўка. Сетачка на ножцы баравіка высакароднага ў цэлым больш далікатная і абмежаваная пераважна яе верхняй часткай. У баравіка сеткаватага капялюш звычайна сухі, замшавы і схільны да растрэсквання, а сетачка на ножцы святлейшая і больш выразная, хоць сама плошча распаўсюджвання сеткі не з'яўляецца надзейным вырашальным крытэрыем.
Boletus pinophilus
Асноўныя адрозненні
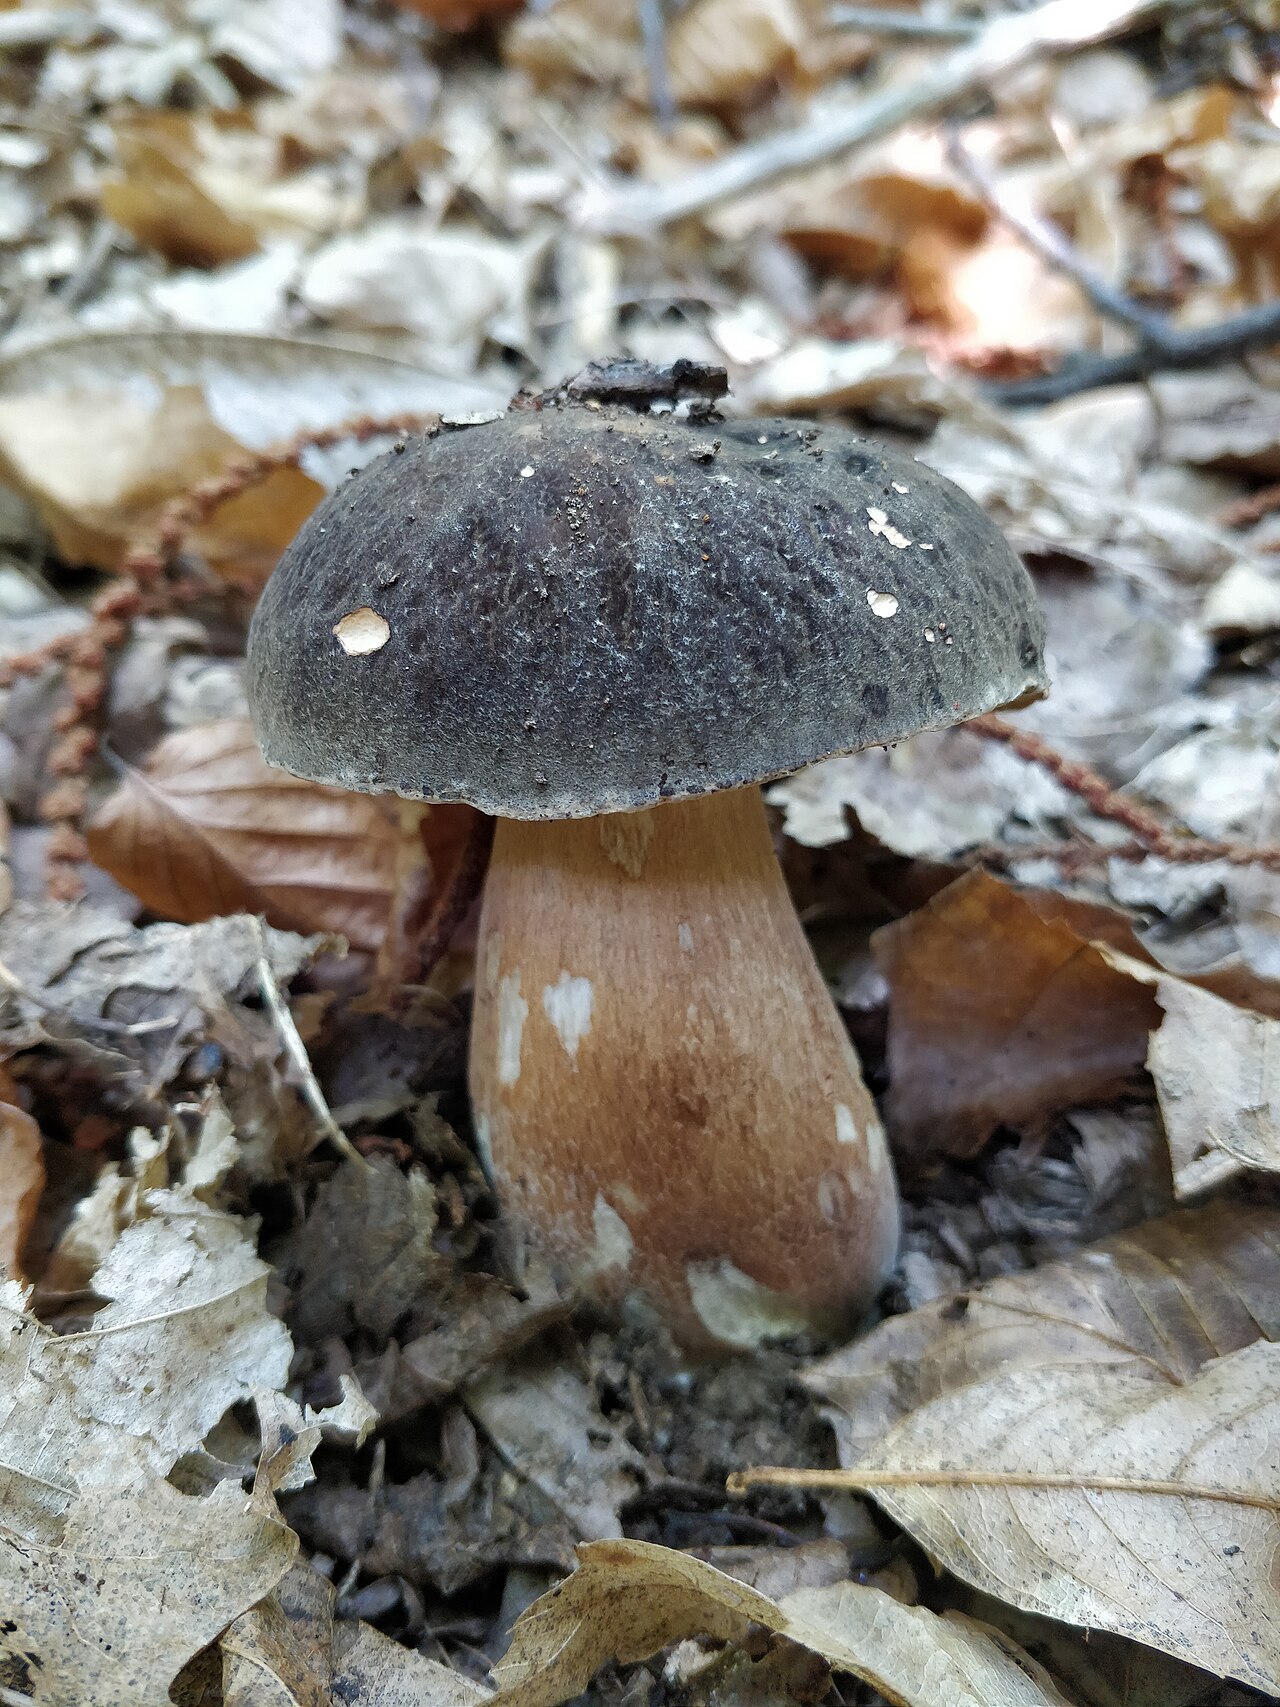
Баравік соснавы (Boletus pinophilus) характарызуецца цёмным, чырванавата-карычневым або амаль чорна-карычневым капялюшам і расце пераважна ў сувязі з соснамі. У мікраскапічнай будове вылучаецца тоўстай, жэлатынізаванай скуркай і канцавымі элементамі шырынёй да 27 µm, якія змяшчаюць чырванавата-карычневы прысценны інкрустуючы пігмент, што раствараецца гідраксідам калію (KOH).
Баравік высакародны (Boletus edulis) часам мае капялюш у адценнях ад светла-карычневага да цёмна-карычневага, часам з жаўтлявым або чырванаватым тонам, але яго паверхня голая, тлуставатая, а сетачка на ножцы звычайна дробная і абмежаваная верхняй часткай. Пад мікраскопам канцавыя элементы скуркі B. edulis маюць 4–19 µm шырыні, а фарбавальнік прысутнічае ўнутры клетак. Наяўнасць чырванаватага адцення і суседства соснаў не з'яўляюцца выключнымі прыкметамі для B. pinophilus, бо B. edulis таксама расце ў хваёвых барах на бедных, кіслых пясках.
Boletus aereus
Асноўныя адрозненні
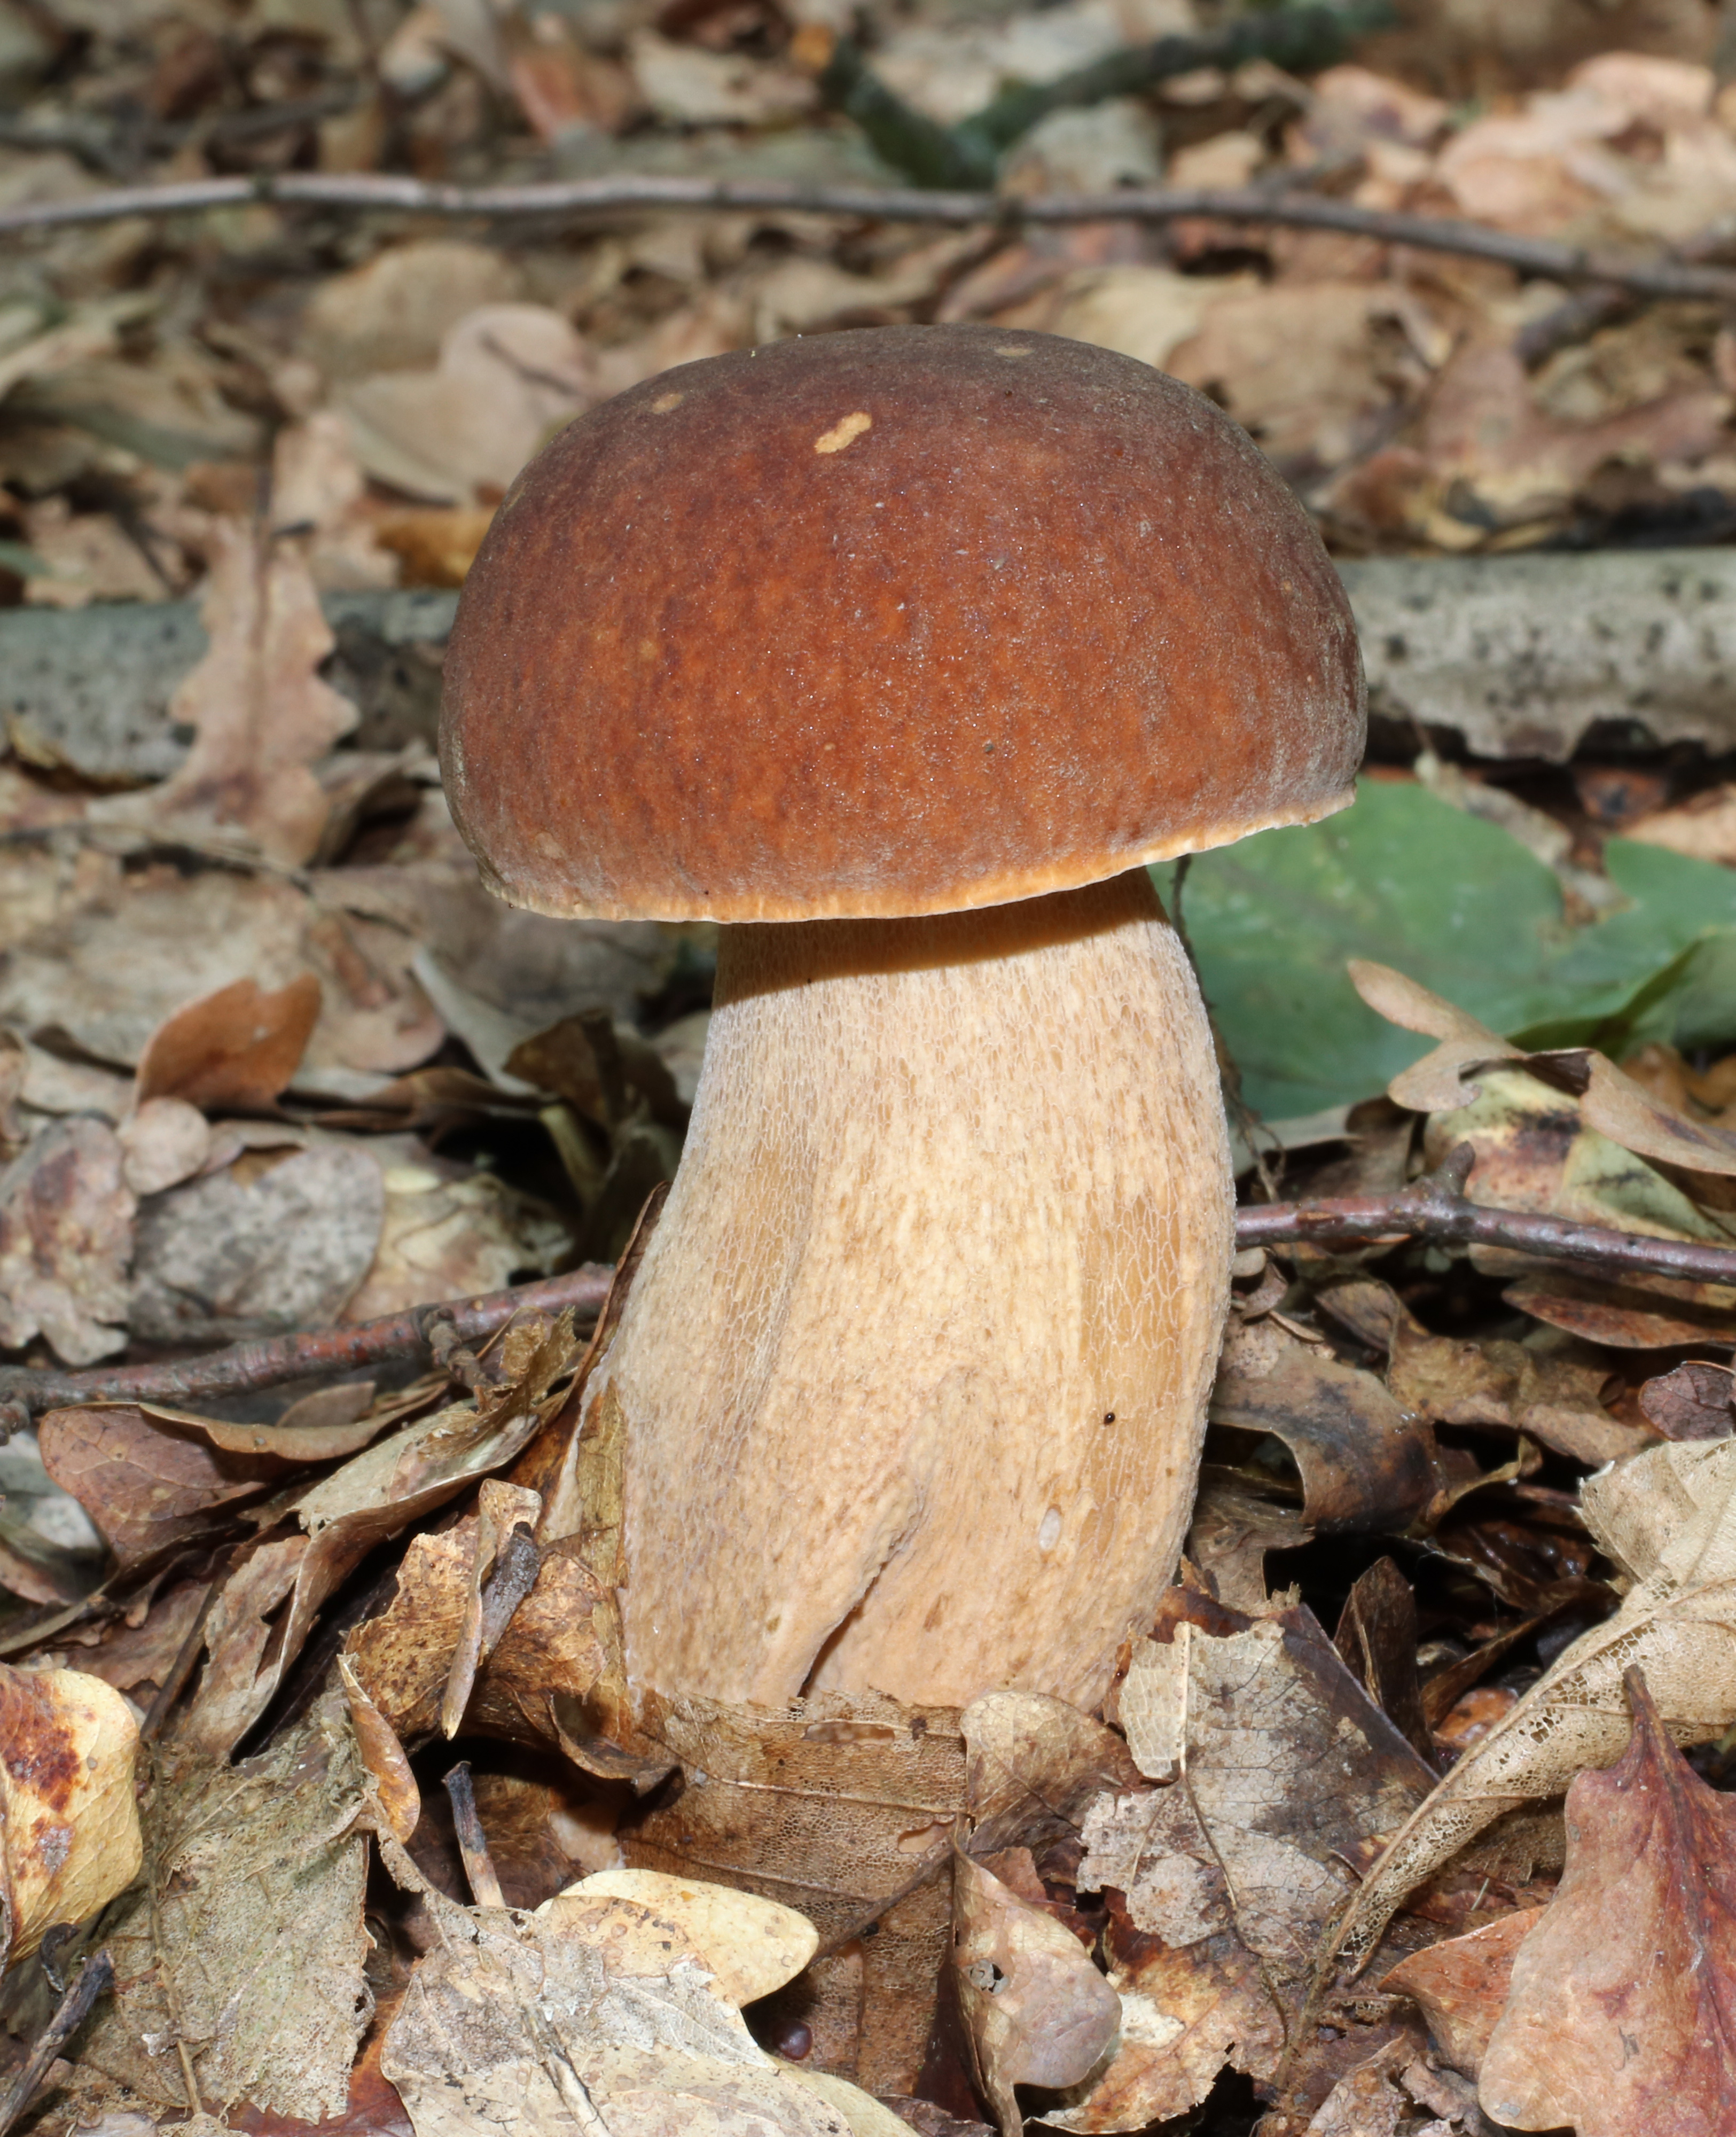
Баравік высакародны (Boletus edulis) адрозніваецца гладкай, у вільготных умовах тлустай навобмацак скуркай шапкі, больш шырокай палітрай больш светлых і больш цёмных адценняў карычневага, а таксама бялявай сетачкай, якая звычайна прысутнічае ў верхняй палове ножкі (радзей спускаецца ніжэй). Мікраскапічна канцавыя элементы скуркі шапкі ў B. edulis маюць 4–19 µm у шырыню, тады як у B. aereus шапка сухая, дробналямцавая і вельмі цёмная, хоць асобныя прыкметы афарбоўкі могуць перакрывацца.
Баравік цёмна-карычневы (Boletus aereus) сустракаецца ў цёплых лісцевых лясах, пераважна дубовых, таксама на вапнавых глебах, радзей пад каштанамі. Мае вельмі цёмную, сухую, далікатна апушаную шапку. Пад мікраскопам канцавыя элементы яго скуркі дасягаюць да 11 µm у шырыню і ўтрымліваюць дробназярністы ўнутрыклеткавы пігмент.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
Крыніца фота · CC BY 3.0Caloboletus calopus
Асноўныя адрозненні
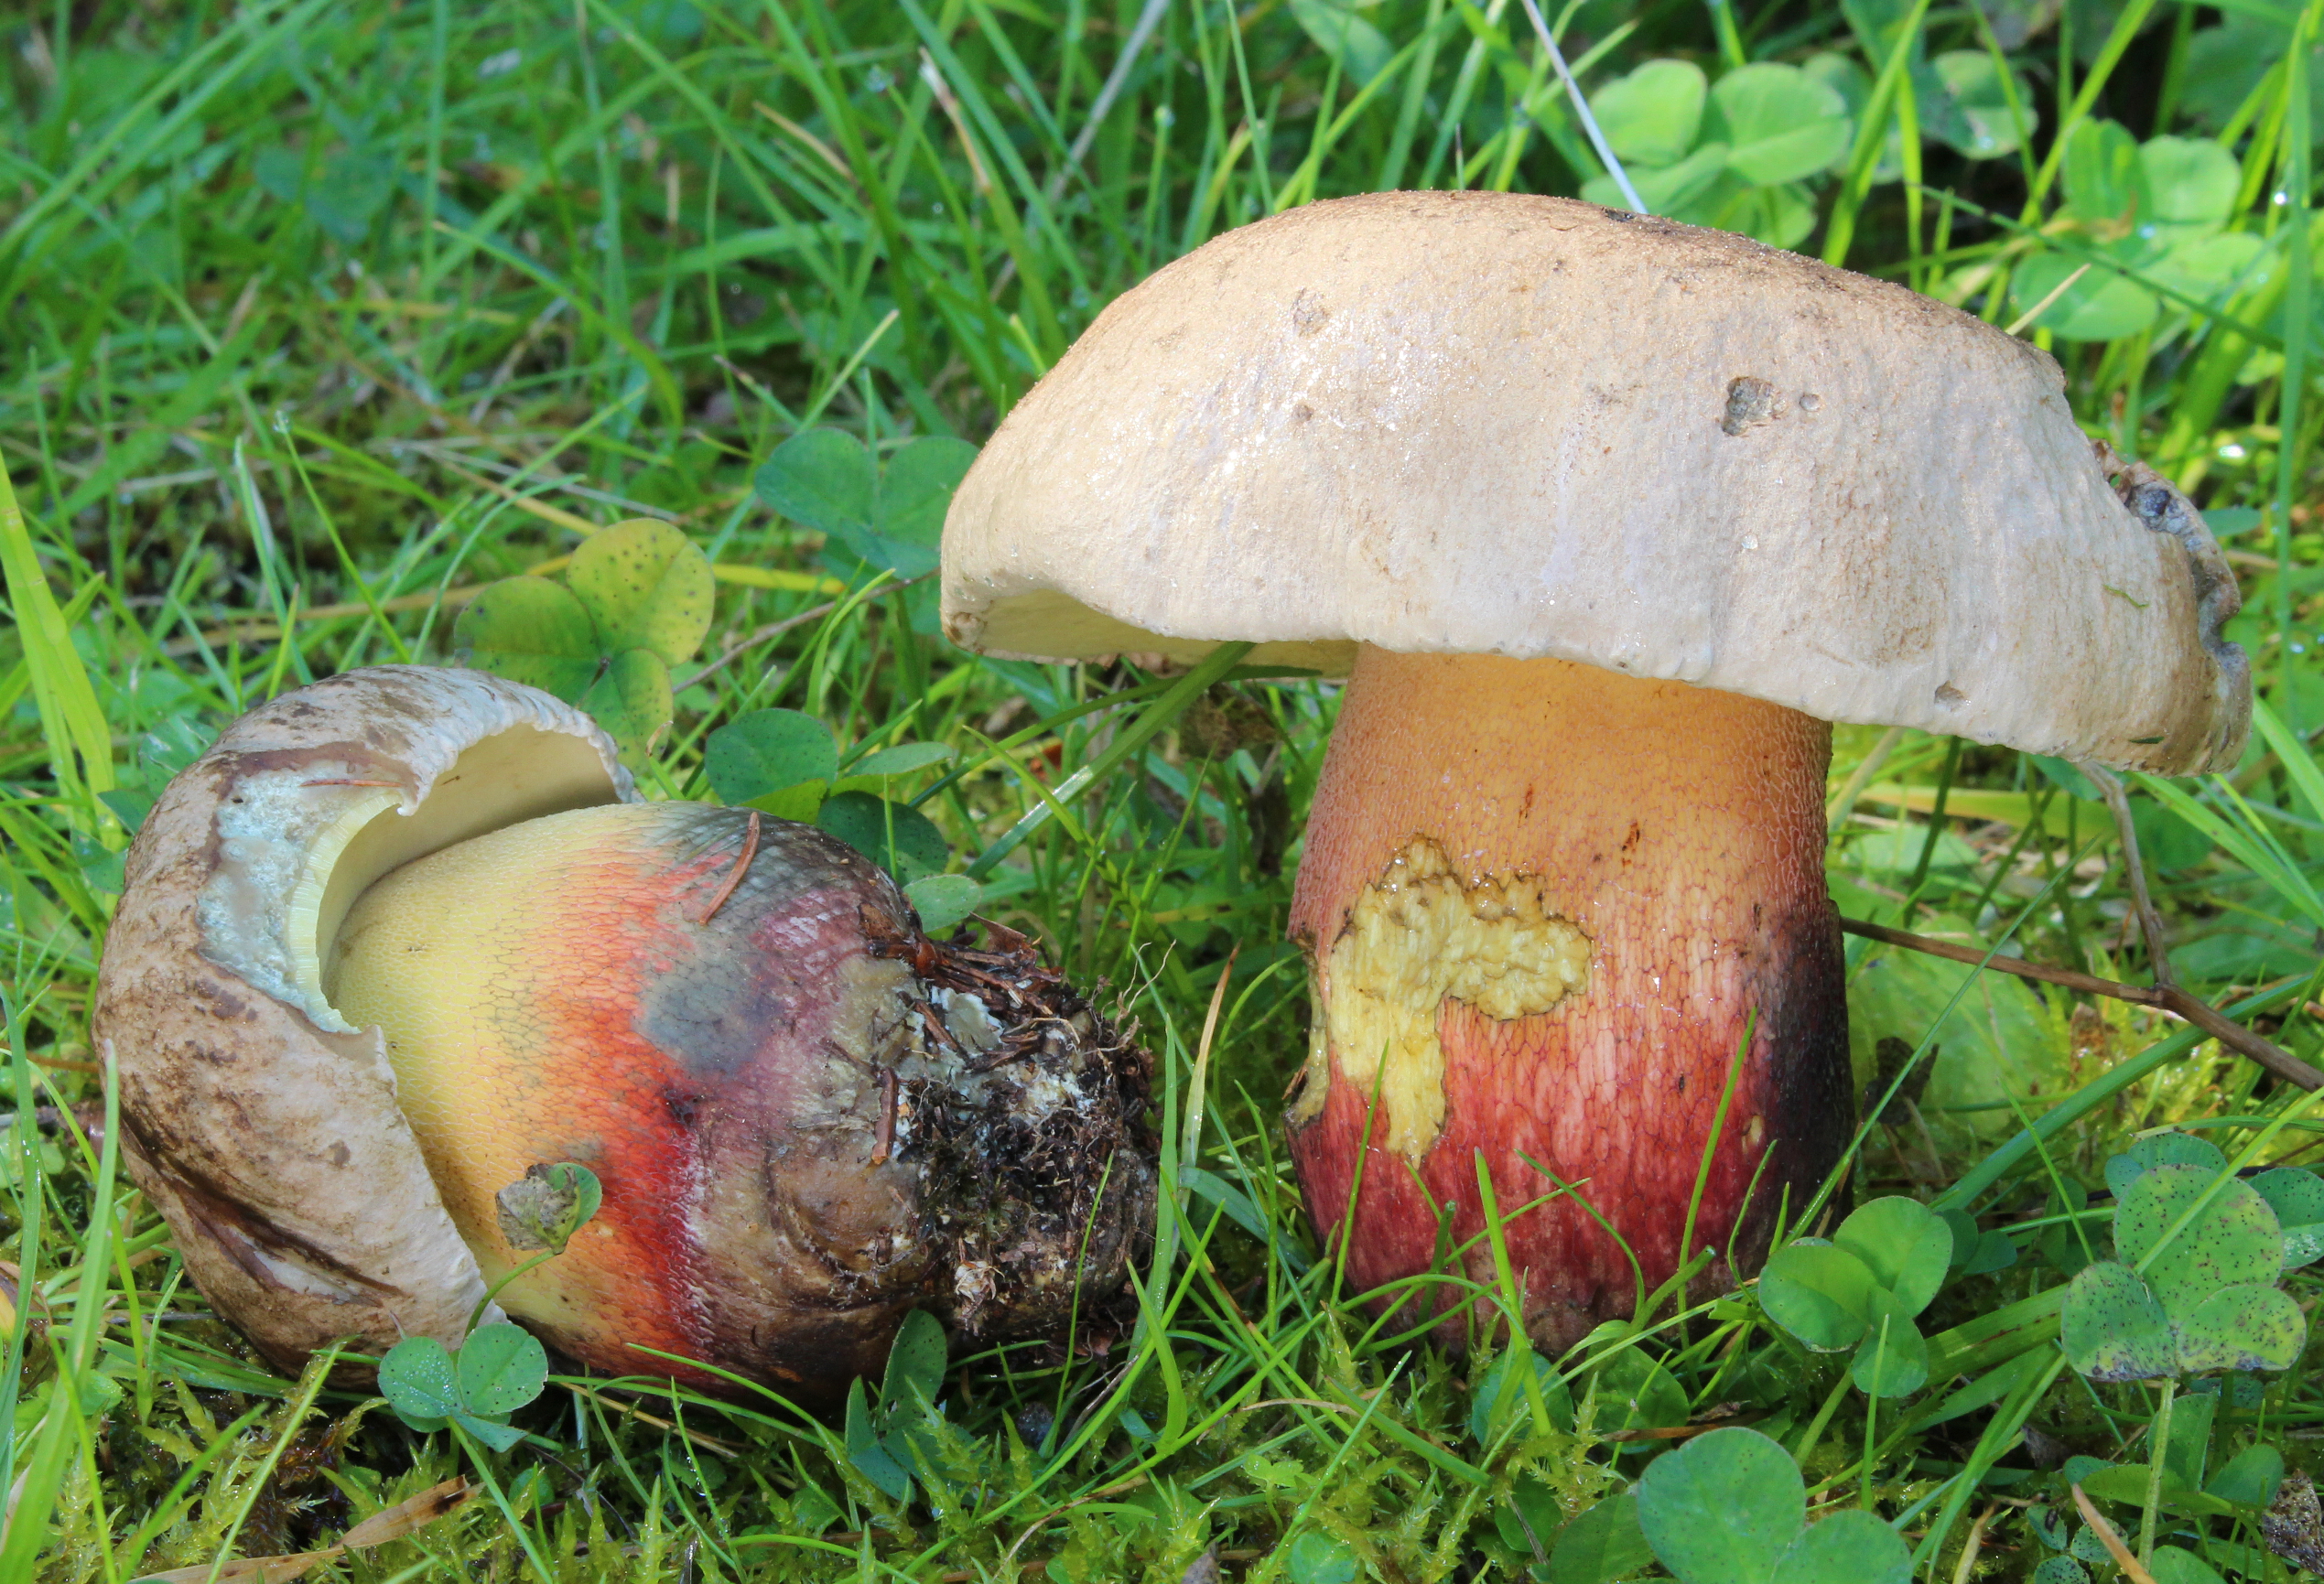
Памылка з белым грыбам (Boletus edulis) у палявых умовах магчымая галоўным чынам пры беглым поглядзе зверху на маладыя пладовыя целы. Белы грыб адрозніваецца карычневай шапкай, трубачкамі ад белых да жоўта-зялёных, якія не сінеюць пры націсканні, а таксама светлай ножкай без следу ярка-чырвонага колеру і мяккім, прыемным смакам.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Крыніца фота · CC BY-SA 4.0Imleria badia
Асноўныя адрозненні
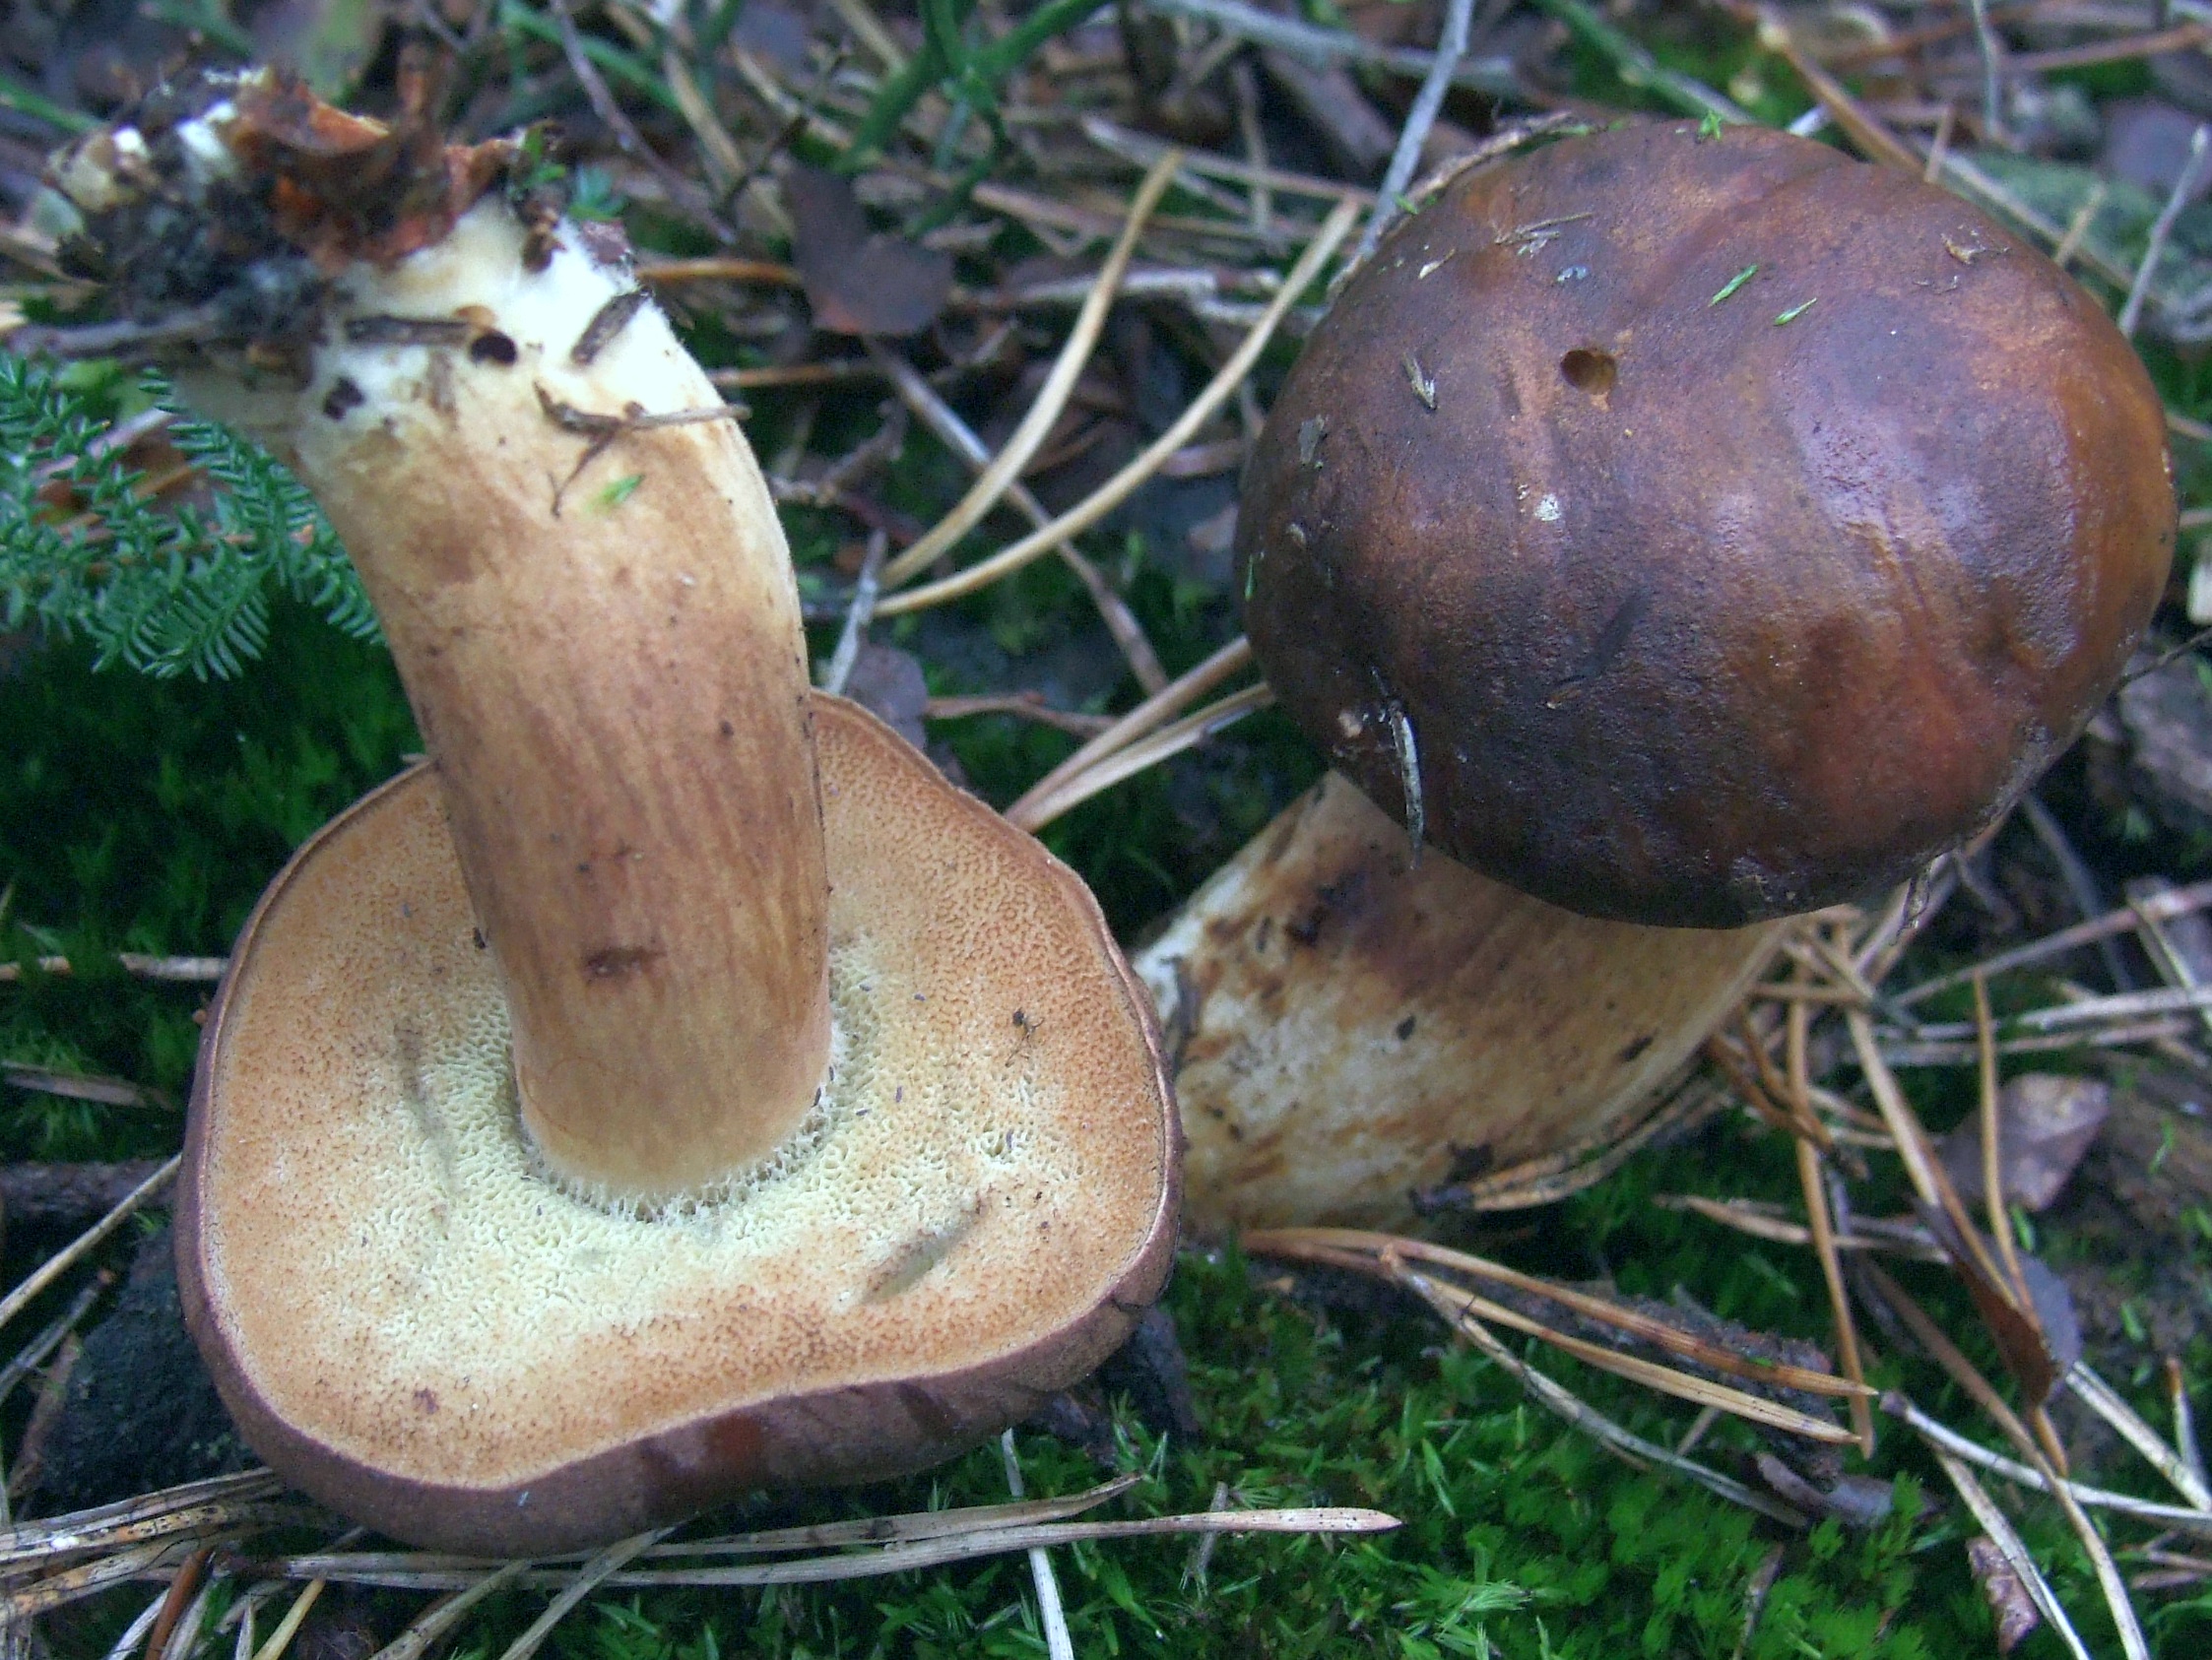
Польскі грыб (Imleria badia) і баравік высакародны (Boletus edulis) — папулярныя ядомыя грыбы. Баравік высакародны мае ножку са светлай сетачкай, а таксама поры, якія напачатку белыя, а з узростам становяцца ад жоўтых да жоўта-аліўкавых і пад націскам не змяняюць колер. Яго мякаць пасля разрэзвання застаецца белай. Польскі грыб мае карычняватую ножку без сетачкі, а поры пад націскам выразна сінеюць да блакітнага колеру. Мякаць польскага грыба пасля разрэзвання блакітнее, асабліва ў капелюшы і над трубачкамі.
FAQ
Ці сінее баравік высакародны пасля разрэзвання?
Не. Мякаць баравіка высакароднага не змяняе колеру пасля разрэзвання — не сінее і не цямнее пры кантакце з паветрам. Адсутнасць змены афарбоўкі на зрэзе — важная дыягнастычная прыкмета.
Ці можа шапка баравіка быць слізкай?
Так. У вільготнае надвор'е шапка бывае слізкай, ліпкай або слізістай і бліскучай, а ў маладых плодавых целаў — злёгку ліпкай. Сама паверхня шапкі бывае гладкай або зморшчанай.
Ці кожны баравік высакародны мае цёмна-карычневую шапку?
Не. Колер шапкі бывае зменлівым: ад светла-карычневага праз арэхавы да цёмна-карычневага і чырвона-карычневага. У шырокім разуменні віду ўлічваюцца таксама формы з яшчэ больш светлай афарбоўкай.
Ці праўдзівец і баравік высакародны — гэта адно і тое ж?
Праўдзівец — гэта размоўная назва баравіка высакароднага, аднак у агульным ужытку яна часам адносіцца таксама да некалькіх падобных відаў баравікоў, якія збіраюць грыбнікі.
Чаму ў баравіка поры то белыя, то жоўта-аліўкавыя?
Гэта залежыць ад спеласці пладовага цела. У маладых грыбоў поры белыя, а ў спелых становяцца ад жоўтых да жоўта-аліўкавых. З узростам дробныя круглявыя поры становяцца да таго ж вуглаватымі.
Ці ўзмацняе сушка пах баравіка?
Так. Свежыя пладовыя целы маюць слабы грыбны пах, тады як сушка выразна ўзмацняе водар. Высушаны баравік пахне значна мацней і з'яўляецца традыцыйным складнікам польскіх супоў і пірагоў.
Якім вялікім можа быць капялюш баравіка высакароднага?
У польскіх крыніцах Снаварскі прыводзіць дыяметр 60–250 мм, а чэшскі Тэйкал — 50–250 мм. У сваю чаргу працы Муньёса і Корханена адзначаюць для баравіка высакароднага капелюшы, якія дасягаюць да 300 мм (30 см).
Як адрозніць баравік высакародны ад гарчака жоўцевага?
Гарчак жоўцевы мае цёмную, тоўстую сетачку на ножцы і спелыя поры ружаватага адцення. У баравіка сетачка дробная, белаватая або светла-карычневая, а спелыя поры — ад жоўтых да жоўта-аліўкавых.
Калі можна знайсці баравік высакародны?
Гэта залежыць ад рэгіянальнага падыходу. У польскіх крыніцах перыяд з'яўлення вызначаецца як лета і восень, тады як у Чэхіі грыб плоданасіць у перыядычным прамежку з чэрвеня па кастрычнік.
Пад якімі дрэвамі расце баравік высакародны?
Баравік высакародны расце ў хвойных, лісцевых і мяшаных лясах. Утварае мікарызныя сувязі з рознымі дрэвамі: крыніцы называюць тут елку, піхту, сасну, бук і бярозу.
Аматар
Ніз шапкі
- Даўжыня трубачак
- Даўжыня трубачак: 5–30 mm.
Назвы і гісторыя
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: карычневы. Колер споравага адбітка: зялёны.
- Адценне споравага адбітка
- Адценне споравага адбітка: цёмна-аліўкава-карычневы. Адценне споравага адбітка: карычнева-аліўкавы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: верацёнападобны. Форма споры: падоўжана-эліпсоідны. Форма споры: верацёнападобны. Форма споры: верацёнападобны. Форма споры: эліпсоідны.
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 12–19,5 µm, шырыня 4–7 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
- Вапнавасць глебы
- Вапнавасць глебы: невапнавая.
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Picea (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Abies (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Pinus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Fagus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Betula (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Picea abies (агульны пералік партнёраў).
Некулінарнае ўжыванне
Што тычыцца пазаклінарнага прымянення белага грыба, навуковыя крыніцы (у тым ліку публікацыя ў IMA Fungus, doi:10.1186/s43008-024-00156-7) адзначаюць нешматлікія мясцовыя этнамікалагічныя сведчанні. У палявых даследаваннях традыцыйных ведаў пра грыбы задакументаваны пераказ пра народную практыку мясцовага прымянення пладовых цел гэтага віду пры захворваннях скуры.
Гэты запіс уяўляе сабой выключна апісанне наяўнай этнамікалагічнай звесткі і элемент мясцовага травянога фальклору, без навуковага пацвярджэння біялагічнай эфектыўнасці або лячэбнага дзеяння. Сучасная мікалагічная і этнабіялагічная літаратура разглядае гэтую згадку толькі як сведчанне даўніх звычаяў, без фармулявання якіх-небудзь тэрапеўтычных ці медыцынскіх рэкамендацый або рэцэптур прымянення. Любое пазакулінарнае выкарыстанне белага грыба мела маргінальны і гістарычны характар у параўнанні з яго паўсюдным харчовым прызначэннем.
Гісторыя і культура
Белы грыб займае фундаментальнае месца ў еўрапейскай культуры і лясных традыцыях, будучы паўсюдна прызнаным самым прэстыжным грыбам у збіральніцкіх традыцыях. У гісторыі навуковай мікалогіі ключавым момантам было фармальнае апісанне і наданне відавой назвы Boletus edulis французскім натуралістам Жанам-Батыстам Бюльярам у 1782 годзе.
У польскай літаратурнай традыцыі матыў баравіка замацаваўся ў III кнізе паэмы Адама Міцкевіча «Пан Тадэвуш» («Заляцанні»), дзе ў апісанні збору грыбоў з'яўляецца згадка пра баравіка, названага ў песні «палкоўнікам грыбоў». Гэтую спасылку, аднак, не варта непасрэдна атаясамліваць з сучасным, строгім таксанамічным разуменнем віду, але з даўнім культурным успрыманнем высакародных лясных грыбоў.
Значэнне гэтага грыба ў народнай культуры Цэнтральна-Усходняй Еўропы пацвярджаюць сучасныя этнабіялагічныя даследаванні, у тым ліку аналізы традыцый, праведзеныя на ўкраінска-румынскім памежжы. Яны паказваюць на выключную трываласць ведаў пра белы грыб у калектыўнай памяці мясцовых супольнасцей. Гэты грыб мае таксама моцную святочную і абрадавую сімволіку, з'яўляючыся традыцыйным элементам вігілійнай вячэры як сімвал сувязі з прыродай.
Ядомасць і бяспека
Белы грыб з'яўляецца паўсюдна цэненым ядомым грыбам з лагодным арэхавым смакам і выразным лясным водарам, які ўзмацняецца пры сушцы. Для спажывання збіраюць здаровыя, свежыя пладовыя целы. Спажыванне старых, пераспелых або пашкоджаных цвіллю пладовых цел можа прывесці да неспецыфічных атручванняў, выкліканых працэсамі распаду тканак. Стандартнай практыкай падрыхтоўкі да ўжывання з'яўляецца тэрмічная апрацоўка грыба (адварванне, тушэнне, абсмажванне), тады як сушка выступае метадам яго кансервацыі.
Традыцыі спажывання дэманструюць рэгіянальную дыферэнцыяцыю. У Польшчы і ў Цэнтральна-Усходняй Еўропе белы грыб з'яўляецца асноўнай грыбной сыравінай, якую традыцыйна сушаць і марынуюць. У Італіі, дзе ён вядомы як porcino, грыб з'яўляецца традыцыйным інгрэдыентам тушаных і смажаных страў. У Францыі пад назвай cèpe ён шырока выкарыстоўваецца ў рэгіянальнай гастраноміі, у той час як у заходнееўрапейскіх кухнях яго папулярнасць узрасла пад уплывам кулінарных традыцый поўдня кантынента.
Месцапражыванне і сустракальнасць
Белы грыб сустракаецца ва ўмераным і барэальным поясе Паўночнага паўшар'я, растучы ў іглічных, лісцевых і мяшаных лясах. Як эктамікарызны грыб ён утварае сувязі са шматлікімі відамі лясных дрэў. Згодна з таксанамічна-экалагічнымі даследаваннямі, да яго асноўных мікарызных партнёраў належаць іглічныя дрэвы, у тым ліку елка (Picea), хвоя (Pinus) і піхта (Abies), а таксама лісцевыя дрэвы, перш за ўсё дуб (Quercus), бук (Fagus), бяроза (Betula) і каштан (Castanea).
Від засяляе розныя тыпы лясных глеб, найчасцей з кіслай рэакцыяй, у тым ліку пясчаныя, пясчана-гліністыя і гумусавыя субстраты, нярэдка ў жывым надглебавым покрыве з імхамі і чарніцамі. Сустракаецца як на нізінах, так і ва ўзгорыстых і горных раёнах.
Задакументаваныя ў зводках дыяпазоны назіранняў пладовых цел у Цэнтральнай Еўропе ахопліваюць у Польшчы перыяд з чэрвеня па лістапад (VI–XI), а ў Чэхіі — з чэрвеня па кастрычнік (VI–X). Гэтыя дыяпазоны вызначаюць часавыя межы фіксацыі пладовых цел у прыродзе ў залежнасці ад пагодных умоў, без беспадстаўнага вылучэння месячных пікаў або рэгіянальных параўнанняў частаты сустракальнасці.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Кулінарная ацэнка
- Вельмі смачны
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Гандаль
- Дапушчаны да гандлю
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Boletus edulis Bull.
- Ранейшыя навуковыя назвы
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Межы таксона і абмежаванні вызначэння
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Экалогія і распаўсюджванне
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
Каўлацыстыды
Скурка шапкі
Рэакцыі з рэактывамі
- Амілоідная рэакцыя
- Амілоідная рэакцыя: адмоўны. [14]
Споры
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: жоўта-карычневай. [20]
- Кроплі ўнутры споры
- Кроплі ўнутры споры: наяўны. [21]
- Даўжыня споры
- Даўжыня споры: 16–19 µm. [20]
Даўжыня споры: 12–18 µm. [17]
Даўжыня споры: 12–19,5 µm. [14]
Даўжыня споры: 14–18 µm. [24]
Даўжыня споры: 13–16,5 µm. [21] - Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 2,5–3,9. [14]
Суадносіны даўжыні і шырыні споры: 2,8–3,6. [21]
Суадносіны даўжыні і шырыні споры: 2,7–3,4. [20] - Форма споры
- Форма споры: верацёнападобны. [24]
Форма споры: падоўжана-эліпсоідны. [17]
Форма споры: верацёнападобны. [17]
Форма споры: верацёнападобны. [21]
Форма споры: эліпсоідны. [21]
Форма споры: верацёнападобны. [20] - Паверхня споры
- Паверхня споры: гладкі. [24]
Паверхня споры: гладкі. [17]
Паверхня споры: гладкі. [21]
Паверхня споры: гладкі. [20] - Таўшчыня сценкі споры
- Таўшчыня сценкі споры: таўстасценны. [20]
Матэрыял і метады даследаванняў
- Вынікі, пададзеныя ў крыніцах — Даўжыня канцавой клеткі скуркі шапкі
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Вынікі, пададзеныя ў крыніцах — Шырыня канцавой клеткі скуркі шапкі
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Вынікі, пададзеныя ў крыніцах — Суадносіны даўжыні і шырыні споры
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Праверка пашырэння — абсяг і абмежаванні
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Падрыхтоўка матэрыялу для мікраскапіі
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Аб’ём апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Прававая аснова і абсяг ацэнкі
Найважнейшыя рэчывы і іх дзеянне
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Месцапражыванне і сустракальнасць
Асяроддзе, рэгіён і сезон
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Крыніцы |
|---|---|---|---|
| Чэхія | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Польшча | Ніжняя Сілезія — абсяг названы крыніцай | VI–XI |
|
Крыніцы
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis