
Jedlý

Povolený na predaj
Nastavte polohu, aby sa zobrazili údaje pre váš región.


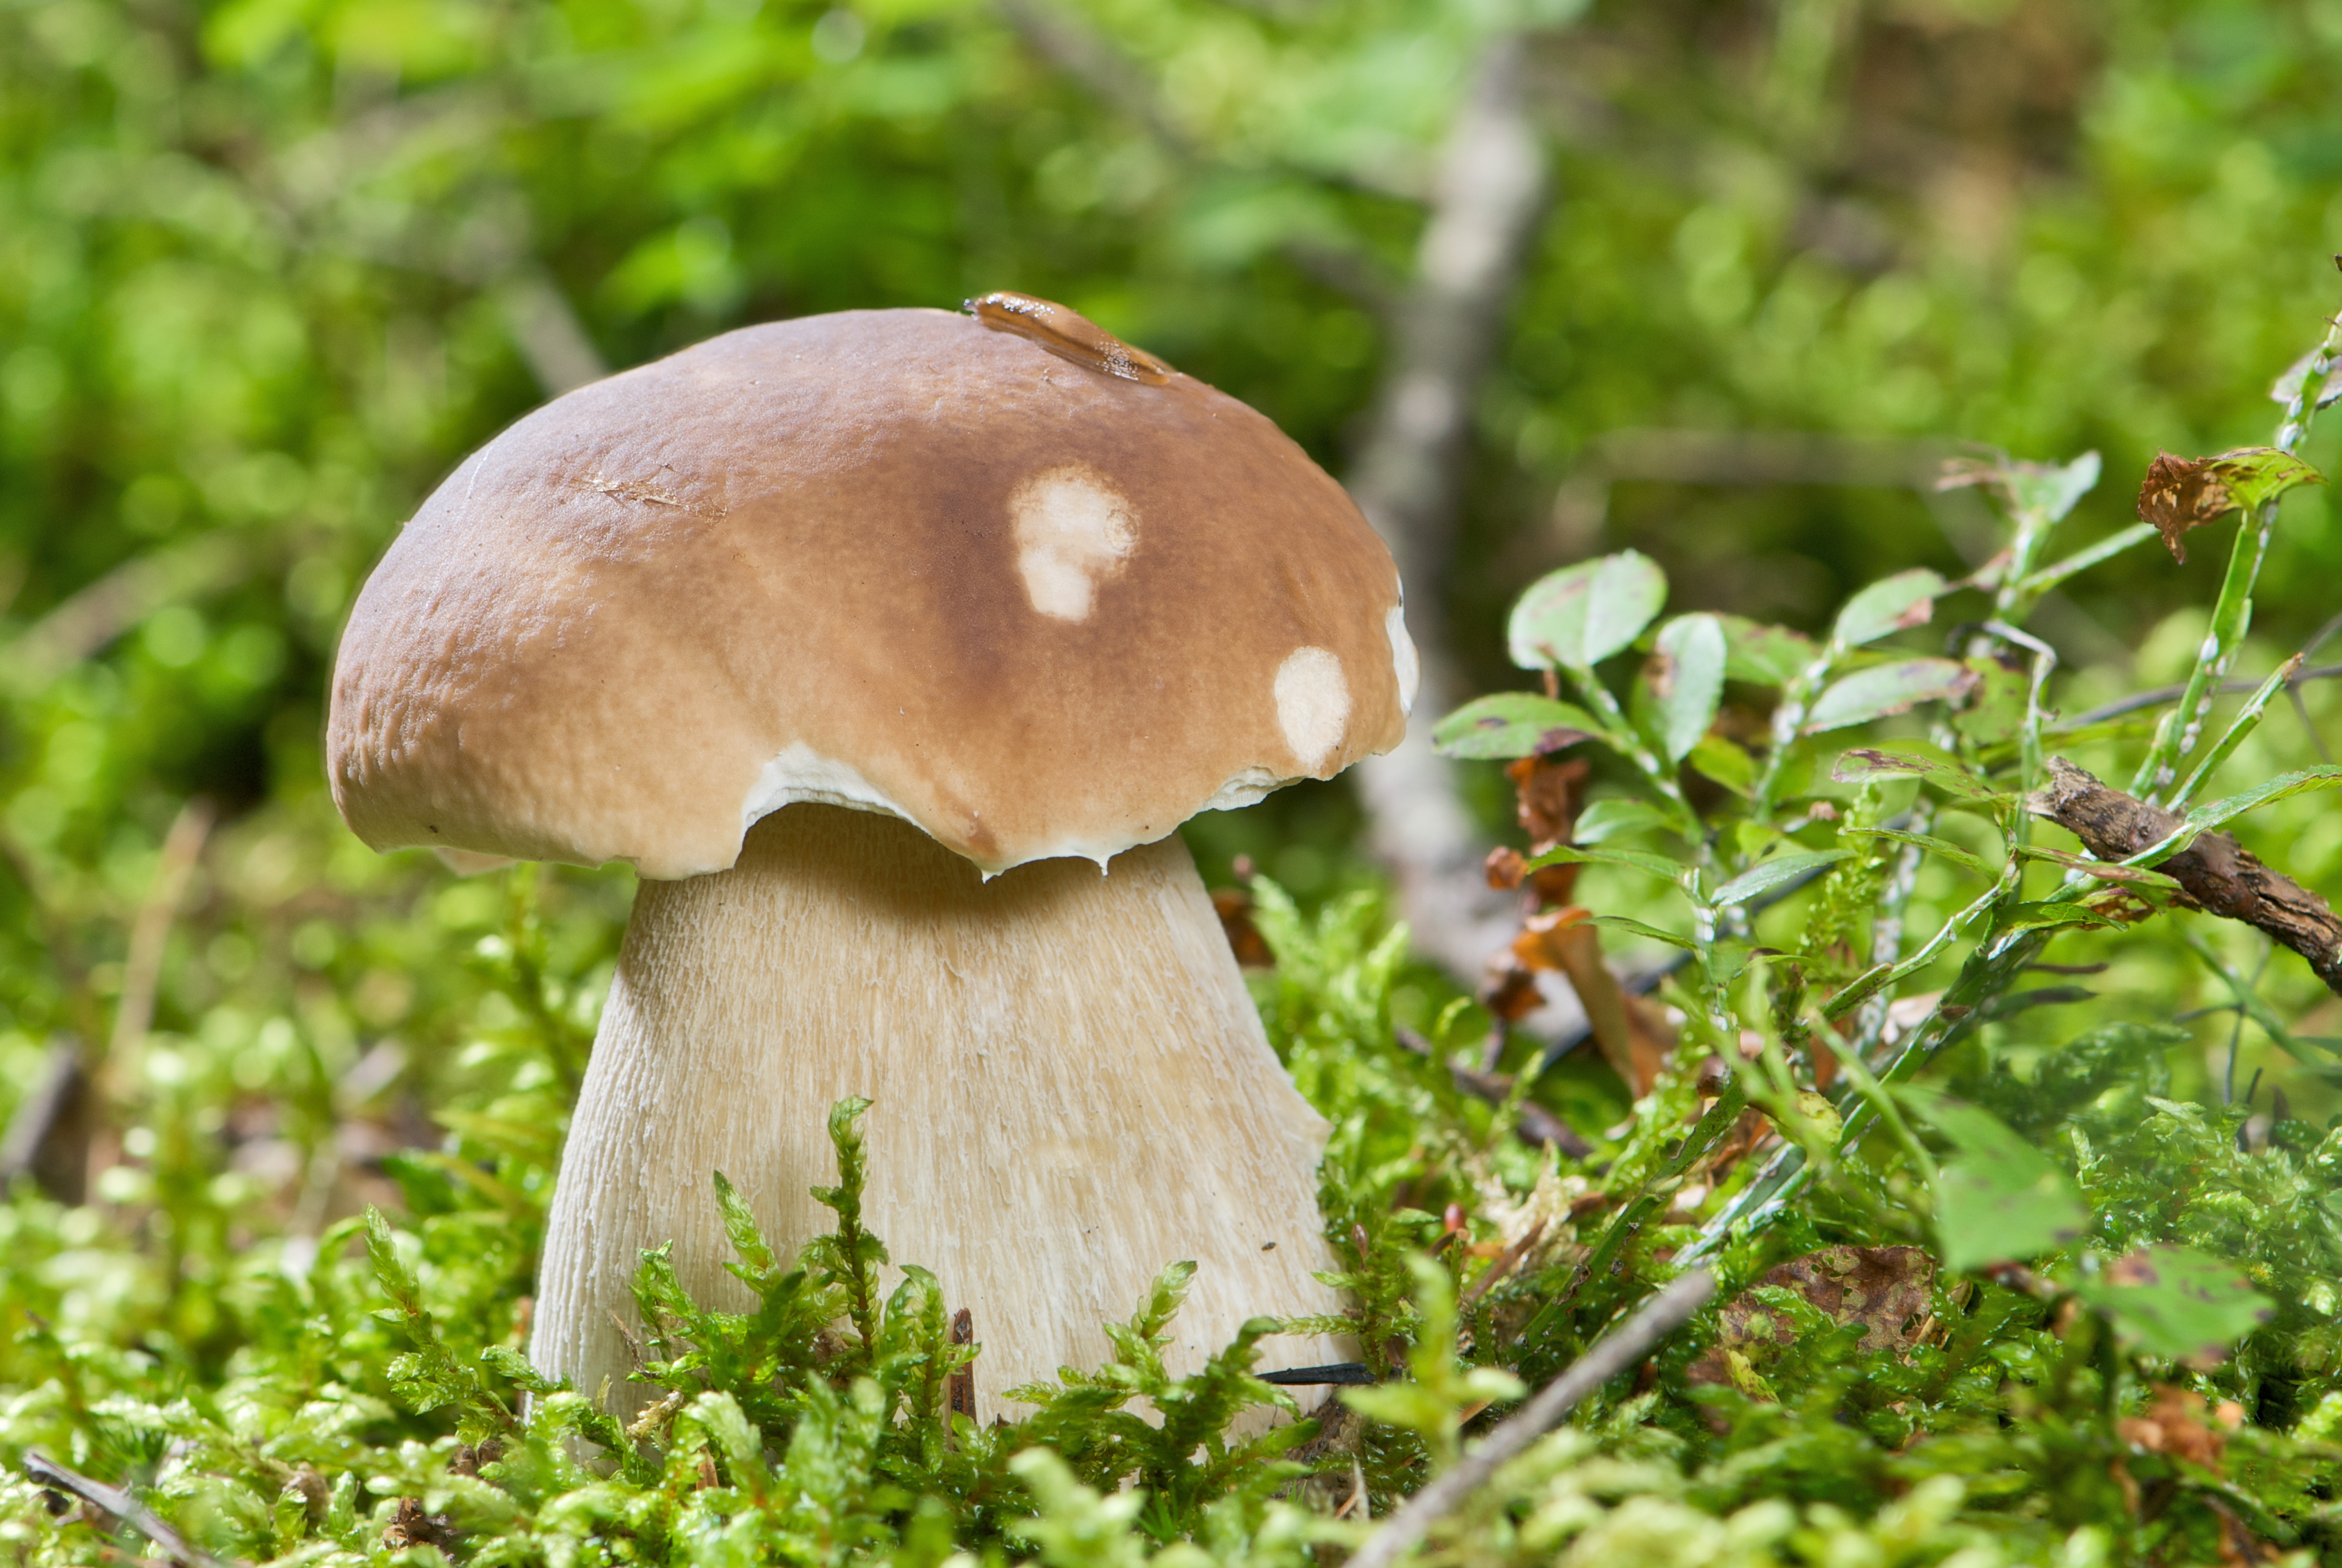


Hríb smrekový (Boletus edulis) je cenená jedlá huba vyskytujúca sa v ihličnatých, listnatých a zmiešaných lesoch na kyslých pôdach. Vytvára plodnice s mäsitým hnedým klobúkom a hlúbikom pokrytým jemnou, belavou alebo svetlohnedou sieťkou. Póry rúrok sú pri mladých hubách biele a pri zrelých menia farbu na žltú až žltoolivovú. Biela dužina nemení po rozkrojení farbu. Tento druh tvorí mykorízu s rôznymi stromami, okrem iného so smrekom, jedľou, borovicou, bukom a brezou.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
Klobúk
- Tvar klobúka
- pri mladých plodniciach: Tvar klobúka: polguľovitý.
pri zrelých plodniciach: Tvar klobúka: vypuklý.
pri zrelých plodniciach: Tvar klobúka: plochý. - Reliéf povrchu klobúka
- Reliéf povrchu klobúka: hladký.
Reliéf povrchu klobúka: zvrásnený. - Pokryv klobúka
- Pokryv klobúka: holá.
- Lesk povrchu klobúka
- za mokra: Lesk povrchu klobúka: lesklý.
- Lepkavosť a slizkosť klobúka
- za mokra: Lepkavosť a slizkosť klobúka: lepkavý.
za mokra: Lepkavosť a slizkosť klobúka: slizký. - Farba klobúka
- Farba klobúka: béžová.
Farba klobúka: hnedý.
Farba klobúka: Tmavohnedá.
pri zrelých plodniciach: Farba klobúka: Tmavohnedá.
pri mladých plodniciach: Farba klobúka: svetlohnedá.
Farba klobúka: svetlohnedá.
Farba klobúka: svetlo okrový.
Farba klobúka: okrovohnedý.
pri zrelých plodniciach: Farba klobúka: červenohnedý.
Farba klobúka: biely (na okraji klobúka). - Priemer klobúka
- Priemer klobúka je 50–300 mm.
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: rúrky.
Rúrky pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: prirastený k hlúbiku (rúrky).
- Profil hymenoforu pri hlúbiku
- Profil hymenoforu pri hlúbiku: vykrojený pri hlúbiku (rúrky).
- Oddeliteľnosť hymenoforu od klobúka
- Oddeliteľnosť hymenoforu od klobúka: ľahko oddeliteľný (rúrky).
- Tvar pórov
- pri mladých plodniciach: Tvar pórov: okrúhly.
pri zrelých plodniciach: Tvar pórov: hranaté. - Farba pórov po poranení
- Farba pórov po poranení: bez zmeny farby.
Farba pórov po poranení: bez zmeny farby. - Farba rúrok po poranení
- Farba rúrok po poranení: bez zmeny farby.
- Prirodzená farba pórov
- pri mladých plodniciach: Prirodzená farba pórov: biely.
pri zrelých plodniciach: Prirodzená farba pórov: žltý.
pri zrelých plodniciach: Prirodzená farba pórov: žltoolivový.
pri zrelých plodniciach: Prirodzená farba pórov: olivovozelenožltá.
pri mladých plodniciach: Prirodzená farba pórov: belavá.
pri zrelých plodniciach: Prirodzená farba pórov: žltozelený. - Prirodzená farba rúrok
- pri zrelých plodniciach: Prirodzená farba rúrok: krémový.
pri zrelých plodniciach: Prirodzená farba rúrok: bledožltý.
pri mladých plodniciach: Prirodzená farba rúrok: biely.
pri zrelých plodniciach: Prirodzená farba rúrok: žltoolivový.
pri zrelých plodniciach: Prirodzená farba rúrok: olivovozelenožltá.
pri mladých plodniciach: Prirodzená farba rúrok: belavá.
pri zrelých plodniciach: Prirodzená farba rúrok: žltý.
pri zrelých plodniciach: Prirodzená farba rúrok: žltozelený.
Hlúbik a báza
- Tvar hlúbika
- pri mladých plodniciach: Tvar hlúbika: súdkovitý.
pri zrelých plodniciach: Tvar hlúbika: kyjakovitý.
Tvar hlúbika: valcovitý.
Tvar hlúbika: kyjakovitý.
Tvar hlúbika: zužujúci sa k báze. - Báza hlúbika
- Báza hlúbika: kyjakovitý.
Báza hlúbika: zhrubnutá. - Farba hlúbika
- Farba hlúbika: belavá.
Farba hlúbika: svetlohnedá. - Reliéf povrchu hlúbika
- v hornej časti hlúbika: Reliéf povrchu hlúbika: sieťovitá.
- Dĺžka hlúbika
- Dĺžka hlúbika: 20–300 mm.
- Priemer hlúbika
- Priemer hlúbika: 15–120 mm.
- Farba sieťky na hlúbiku
- v hornej časti hlúbika: Farba sieťky na hlúbiku: belavá.
v hornej časti hlúbika: Farba sieťky na hlúbiku: svetlohnedá.
v hornej časti hlúbika: Farba sieťky na hlúbiku: biely.
Dužina
- Farba dužiny
- Farba dužiny: biely.
Farba dužiny: červenohnedý (dužina klobúka, pod pokožkou).
Farba dužiny: ružovkastý (dužina klobúka, pod pokožkou).
Farba dužiny: hnedkastý (dužina pri báze hlúbika). - Pevnosť dužiny
- pri mladých plodniciach: Pevnosť dužiny: pevný.
pri zrelých plodniciach: Pevnosť dužiny: mäkký. - Chuť dužiny
- Chuť dužiny: slabý.
- Pružnosť dužiny
- pri mladých plodniciach: Pružnosť dužiny: pružný.
- Štruktúra dužiny
- pri zrelých plodniciach: Štruktúra dužiny: vatovitý.
pri starých plodniciach: Štruktúra dužiny: hubovitý. - Farba dužiny po poranení
- Farba dužiny po poranení: bez zmeny farby.
Farba dužiny po poranení: bez zmeny farby.
Farba dužiny po poranení: bez zmeny farby. - Vôňa dužiny
- Vôňa dužiny: hubový, slabý.
Vôňa dužiny: slabý. - Chuťový tón dužiny
- Chuťový tón dužiny: orechový.
Kde a kedy rastie
- Stanovište
- Stanovište: ihličnatý les.
Stanovište: listnatý les.
Stanovište: zmiešaný les. - Substrát
- Substrát: pôda.
- Spôsob rastu plodníc
- Spôsob rastu plodníc: jednotlivo.
Spôsob rastu plodníc: v skupinách. - Frekvencia výskytu
- Frekvencia výskytu: hojný.
- Obdobie rastu
- Plodnice sa objavujú od júna do novembra.
- Oblasť výskytu
Jedlosť a kuchyňa
- Jedlosť
- Jedlý
- Kulinárske hodnotenie
- Veľmi chutný
Právo
Predpisy pre lokalitu: Poľsko
- Ochrana
- Na Boletus edulis sa v Poľsku nevzťahuje zákonná druhová ochrana.
- Obchod
- Povolený na predaj
Možnosť zámeny
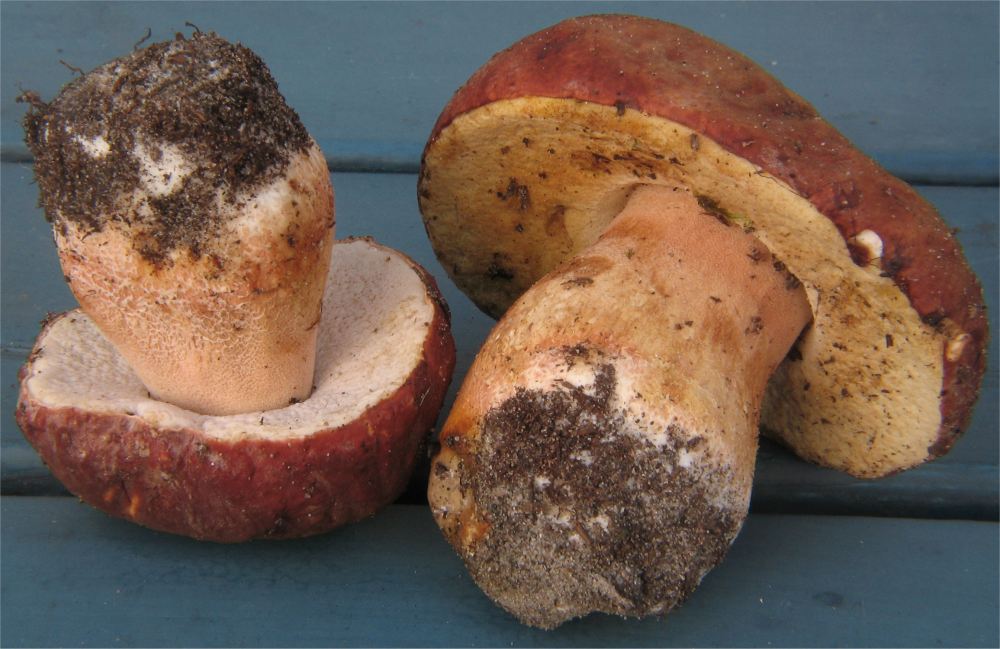
Tylopilus felleus
Hlavné rozdiely
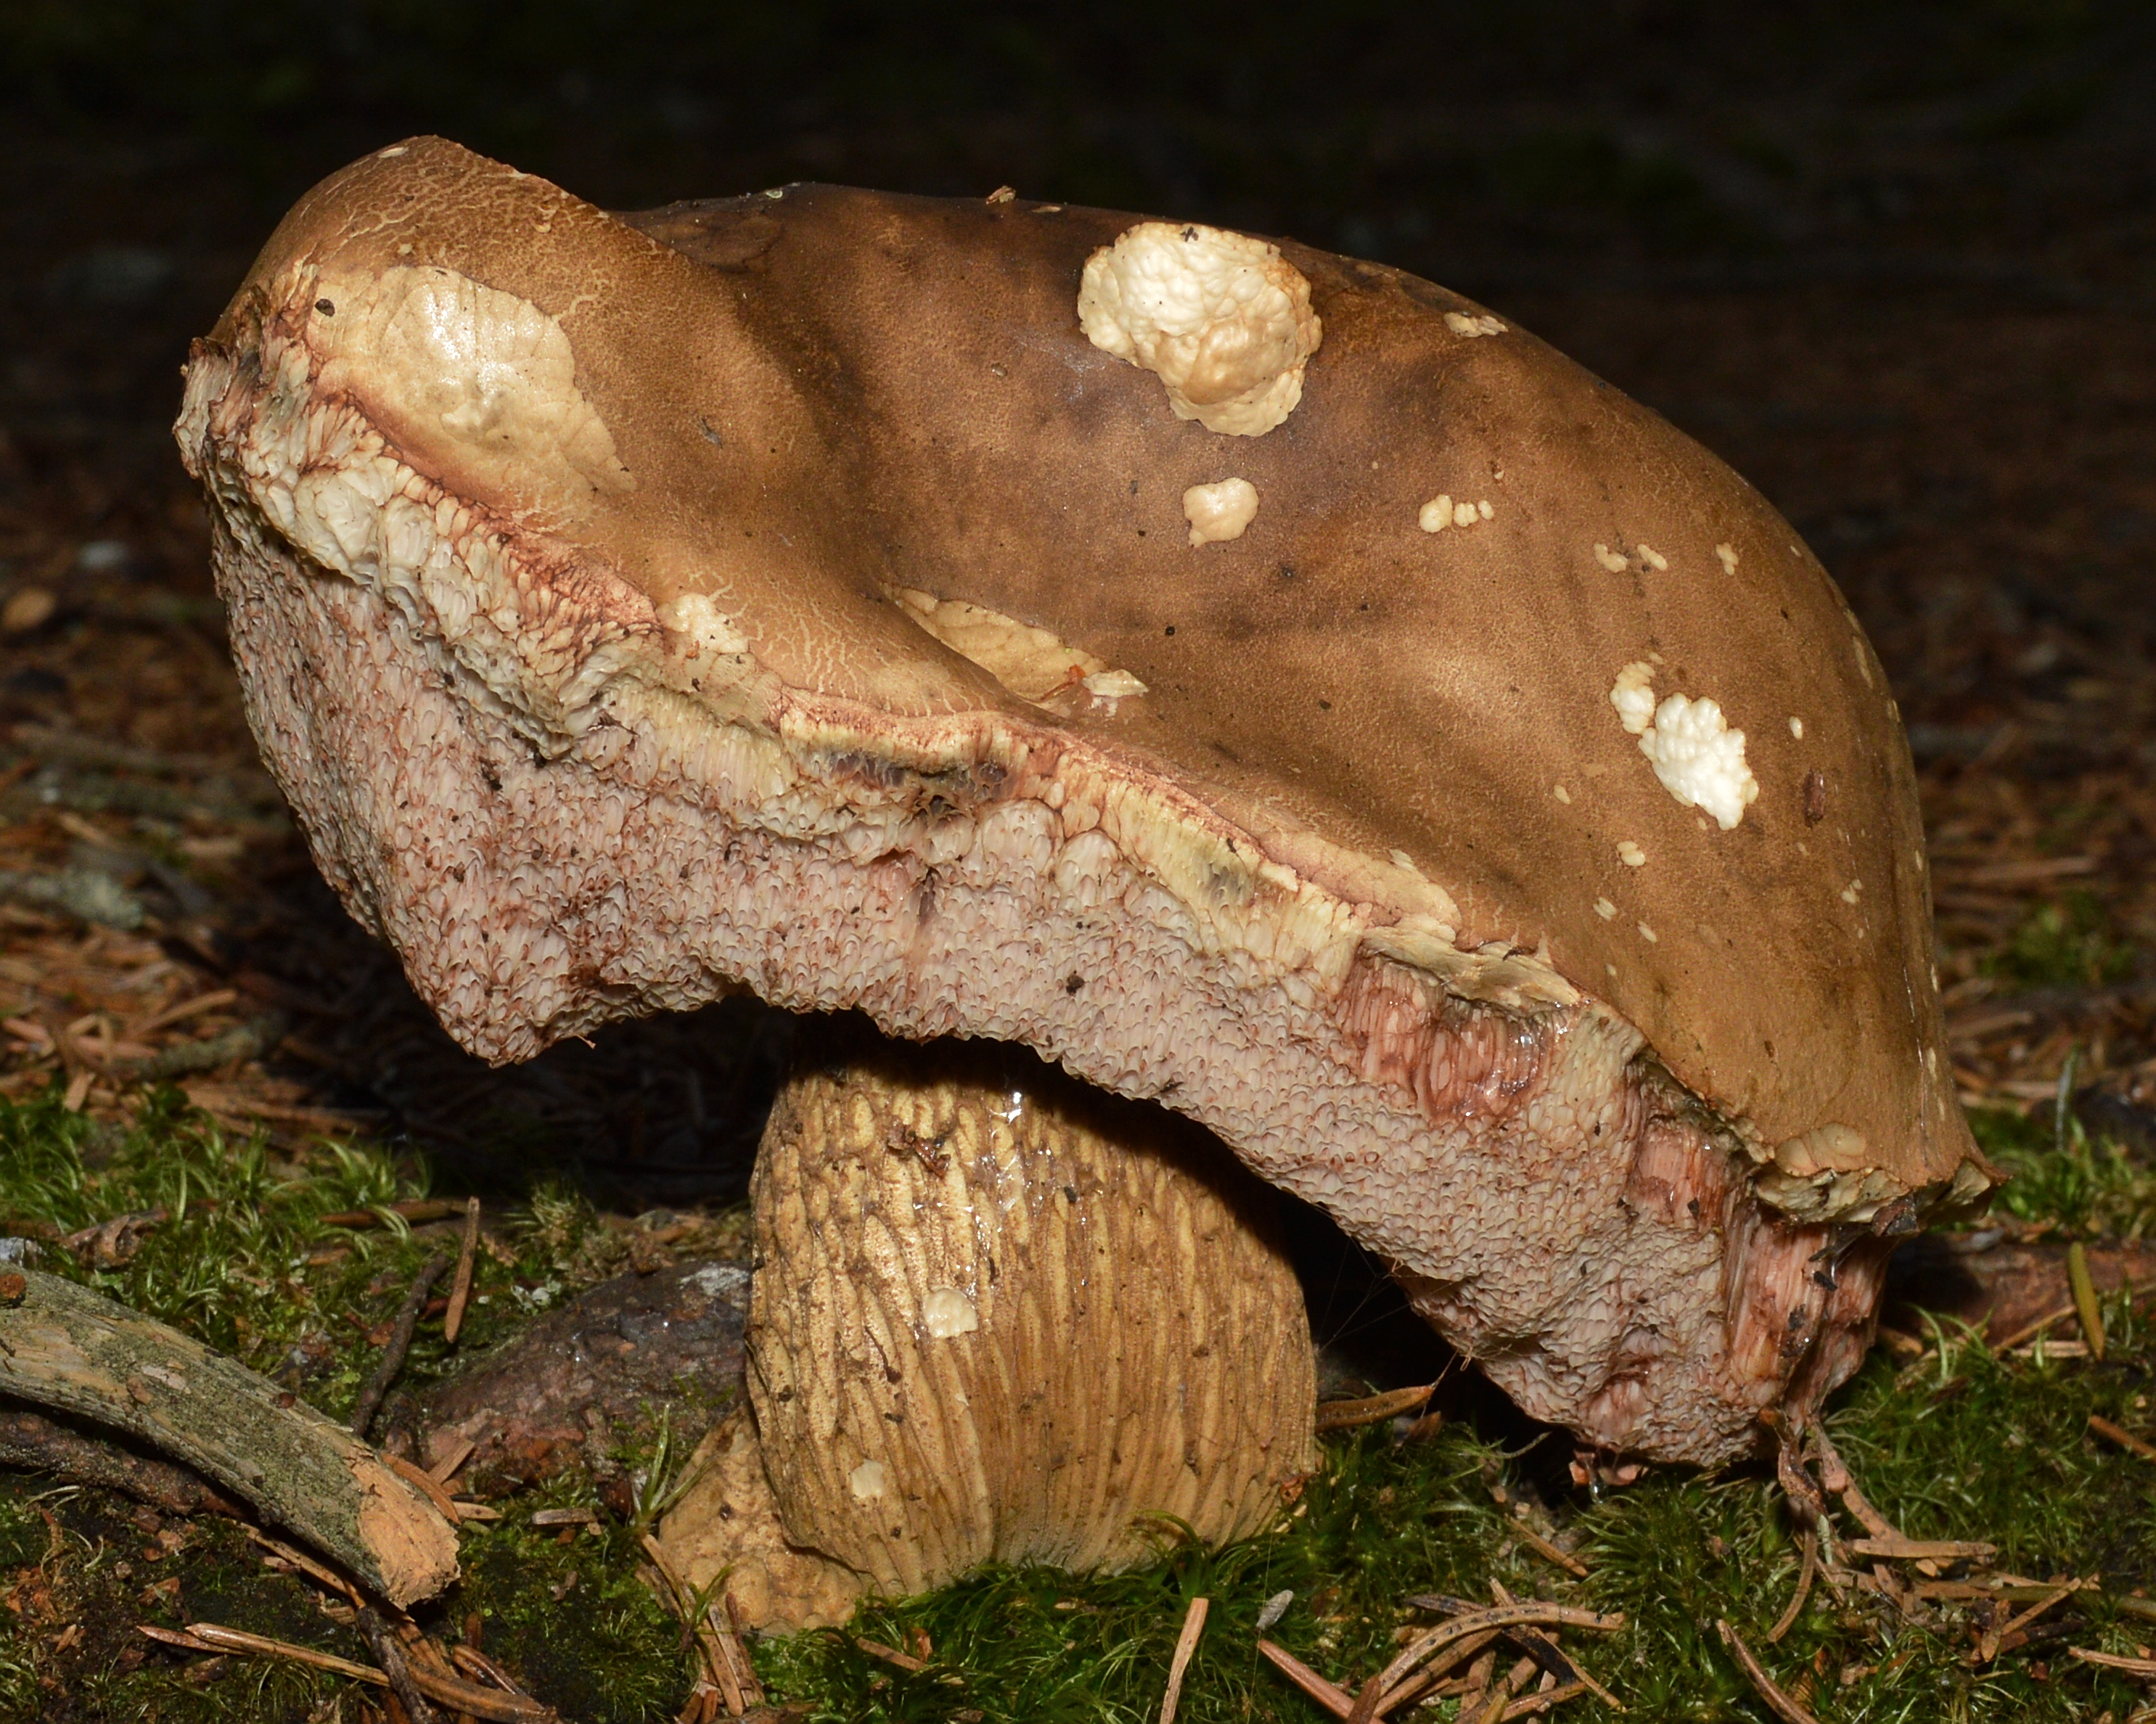
Podhríb žlčový (Tylopilus felleus) má u mladých plodníc belavé póry, preto býva zamieňaný s hríbom smrekovým. Ako však dozrieva, jeho póry sa stávajú špinavoružovými, sieťka na hlúbiku je hrubá, tmavá a vystúpená a klobúk zostáva matný a plstnatý. Dužina podhríba žlčového sa vyznačuje intenzívnou horkosťou, ktorú neodstráni varenie ani sušenie, v dôsledku čoho aj jediná plodnica pokazí chuť celého jedla.
Hríb smrekový (Boletus edulis) pripomína mladý podhríb žlčový habitusom a hnedým klobúkom. Líši sa však svetlejším, spočiatku bielym hlúbikom pokrytým jemnou, svetlou sieťkou (viditeľnou najmä v jeho hornej časti). Rúrky a póry hríba smrekového navyše vekom menia farbu z bielej na žltozelenú a olivovozelenú, zatiaľ čo u podhríba žlčového ružovejú.
George Chernilevsky · Public domain
Bez zmian względem zachowanego oryginału.
Zdroj fotografie · Public domainBoletus reticulatus
Hlavné rozdiely
Hríb sieťkovaný (Boletus reticulatus) sa vyznačuje klobúkom s matným, zamatovým alebo dlho oinovateným povrchom, ktorý počas sucha často praská na drobné políčka, a výraznou sieťkou pokrývajúcou často takmer celý hlúbik. Vyskytuje sa najmä pod bukmi a dubmi, pričom sa zvyčajne objavuje skôr v sezóne než hríb smrekový. Vzhľadom na premenlivosť znakov povrchu a rozsahu sieťky pri oboch druhoch samotný rozsah ôk na hlúbiku nie vždy umožňuje ich jednoznačné rozlíšenie.
Hríb smrekový (Boletus edulis) má zvyčajne hladší povrch klobúka, ktorý sa za vlhkého počasia stáva lepkavým a slizkým, a na jeho okraji je často viditeľný úzky, svetlejší lem. Sieťka na hlúbiku hríba smrekového je vo všeobecnosti jemnejšia a obmedzená najmä na jeho hornú časť. Pri hríbe sieťkovanom je klobúk zvyčajne suchý, zamatový a náchylný na praskanie a sieťka na hlúbiku svetlejšia a výraznejšia, hoci samotná rozloha sieťky nepredstavuje spoľahlivé rozhodujúce kritérium.
Boletus pinophilus
Hlavné rozdiely
Hríb sosnový (Boletus pinophilus) sa vyznačuje tmavým, červenohnedým alebo takmer čiernohnedým klobúkom a rastie prevažne v spojení s borovicami. V mikroskopickej stavbe vyniká hrubou, želatinizovanou pokožkou a koncovými prvkami so šírkou do 27 µm, ktoré obsahujú červenohnedý, nástenný inkrustujúci pigment, rozpustný v hydroxide draselnom (KOH).
Hríb smrekový (Boletus edulis) máva klobúk v odtieňoch od svetlohnedej po tmavohnedú, niekedy so žltkastým alebo červenkastým tónom, no jeho povrch je holý, mastný a sieťka na hlúbiku býva zvyčajne jemná a obmedzená na hornú časť. Mikroskopicky majú koncové prvky pokožky B. edulis šírku 4–19 µm a farbivo sa vyskytuje vnútri buniek. Prítomnosť červenkastého odtieňa a susedstvo borovíc nie sú výlučnými znakmi pre B. pinophilus, keďže B. edulis rastie aj v borovicových lesoch na chudobných, kyslých pieskoch.
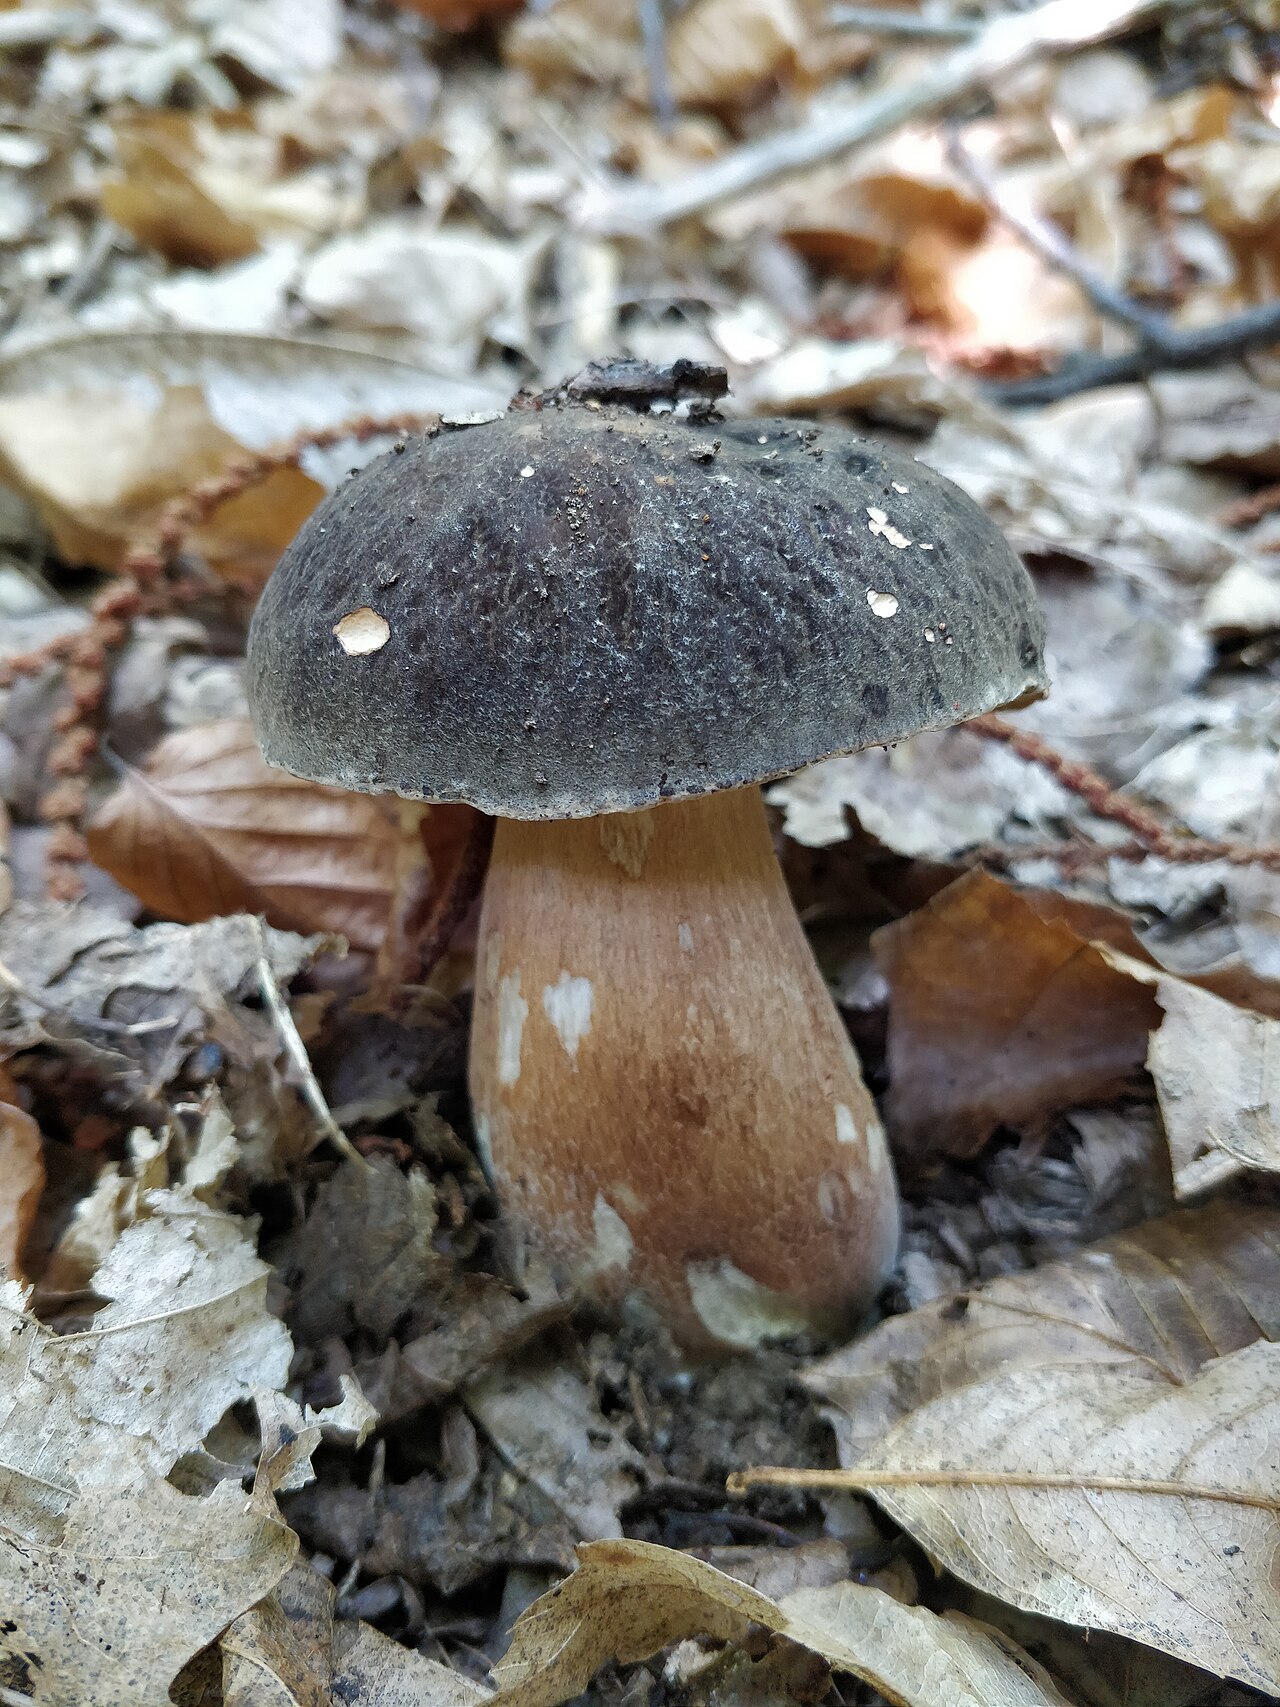
Boletus aereus
Hlavné rozdiely
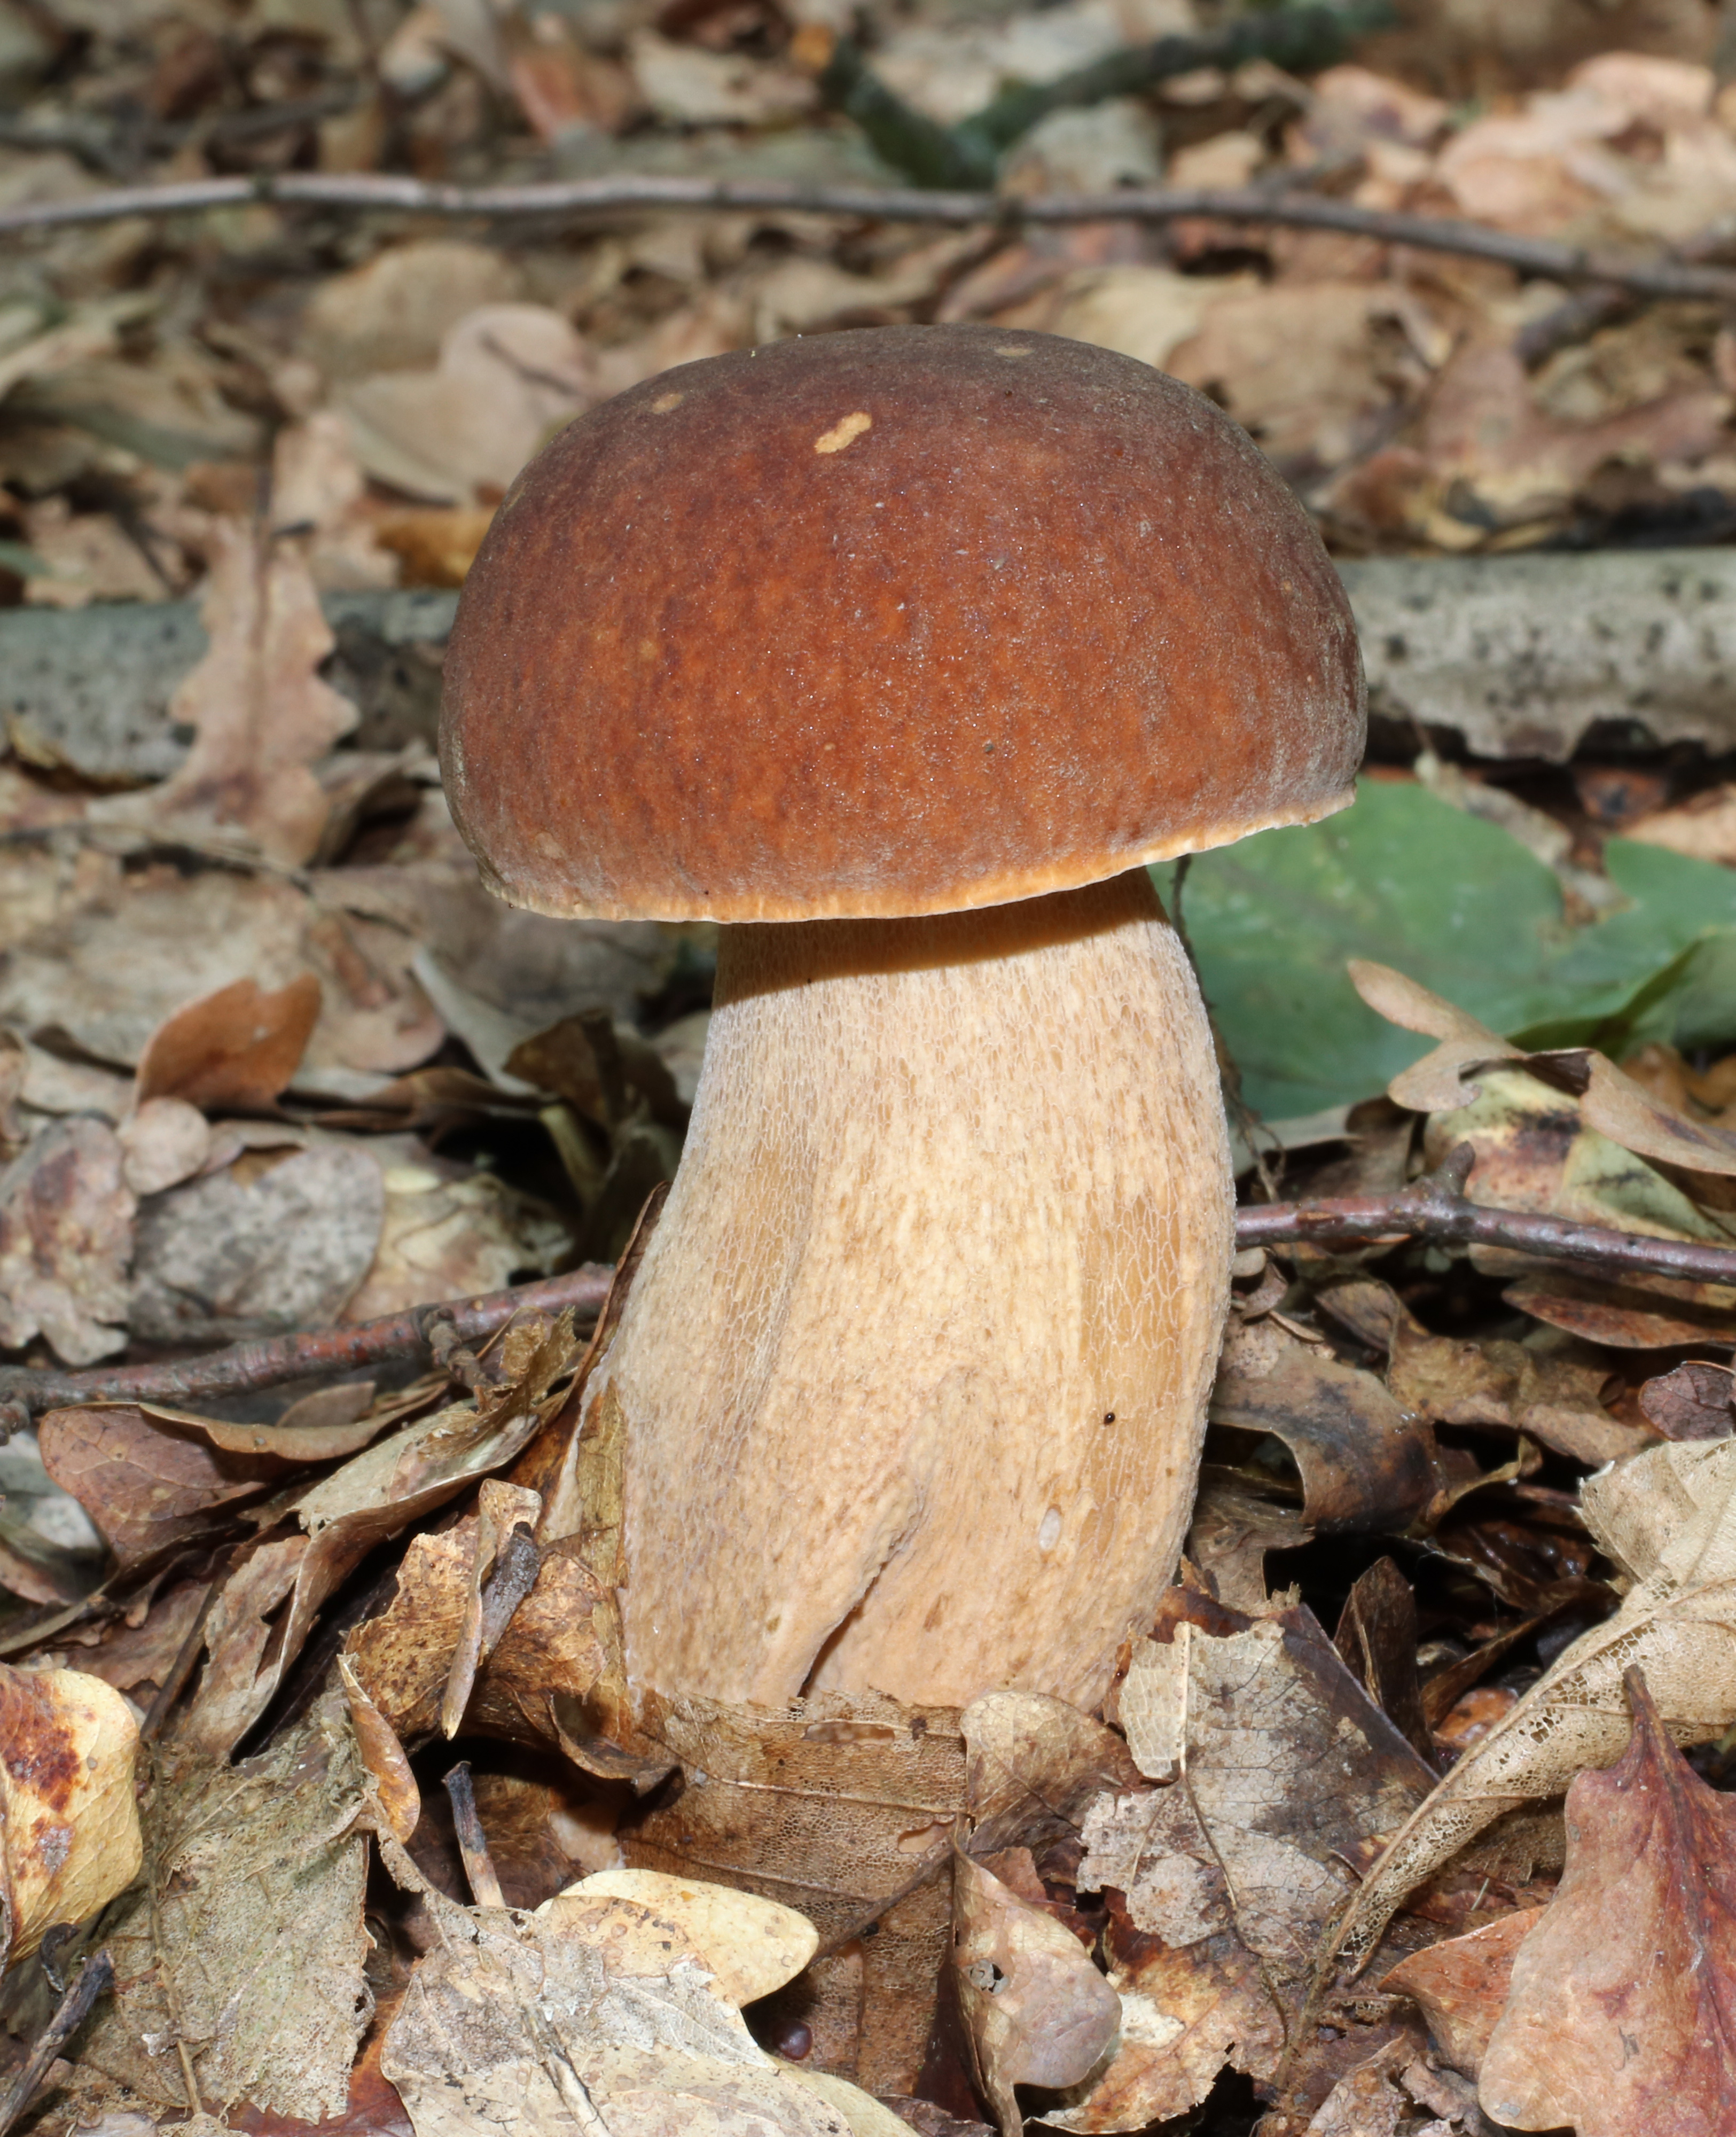
Hríb smrekový (Boletus edulis) sa odlišuje hladkou, vo vlhkých podmienkach na dotyk mastnou pokožkou klobúka, širšou paletou svetlejších a tmavších odtieňov hnedej a belavou sieťkou prítomnou zvyčajne v hornej polovici hlúbika (zriedkavejšie zostupujúcou nižšie). Mikroskopicky majú koncové prvky pokožky klobúka pri B. edulis šírku 4–19 µm, zatiaľ čo pri B. aereus je klobúk suchý, jemne plstnatý a veľmi tmavý, hoci jednotlivé znaky sfarbenia sa môžu prelínať.
Hríb bronzový (Boletus aereus) sa vyskytuje v teplých listnatých lesoch, najmä dubových, aj na vápnitých pôdach, zriedkavejšie pod gaštanmi. Má veľmi tmavý, suchý, jemne plstnatý klobúk. Pod mikroskopom dosahujú koncové prvky jeho pokožky šírku do 11 µm a obsahujú jemnozrnný vnútrobunkový pigment.
H. Krisp · CC BY 3.0
Plik źródłowy jest oznaczony jako wykadrowany (cropped). Dokładny oryginalny plik Commons; bez dodatkowych lokalnych zmian.
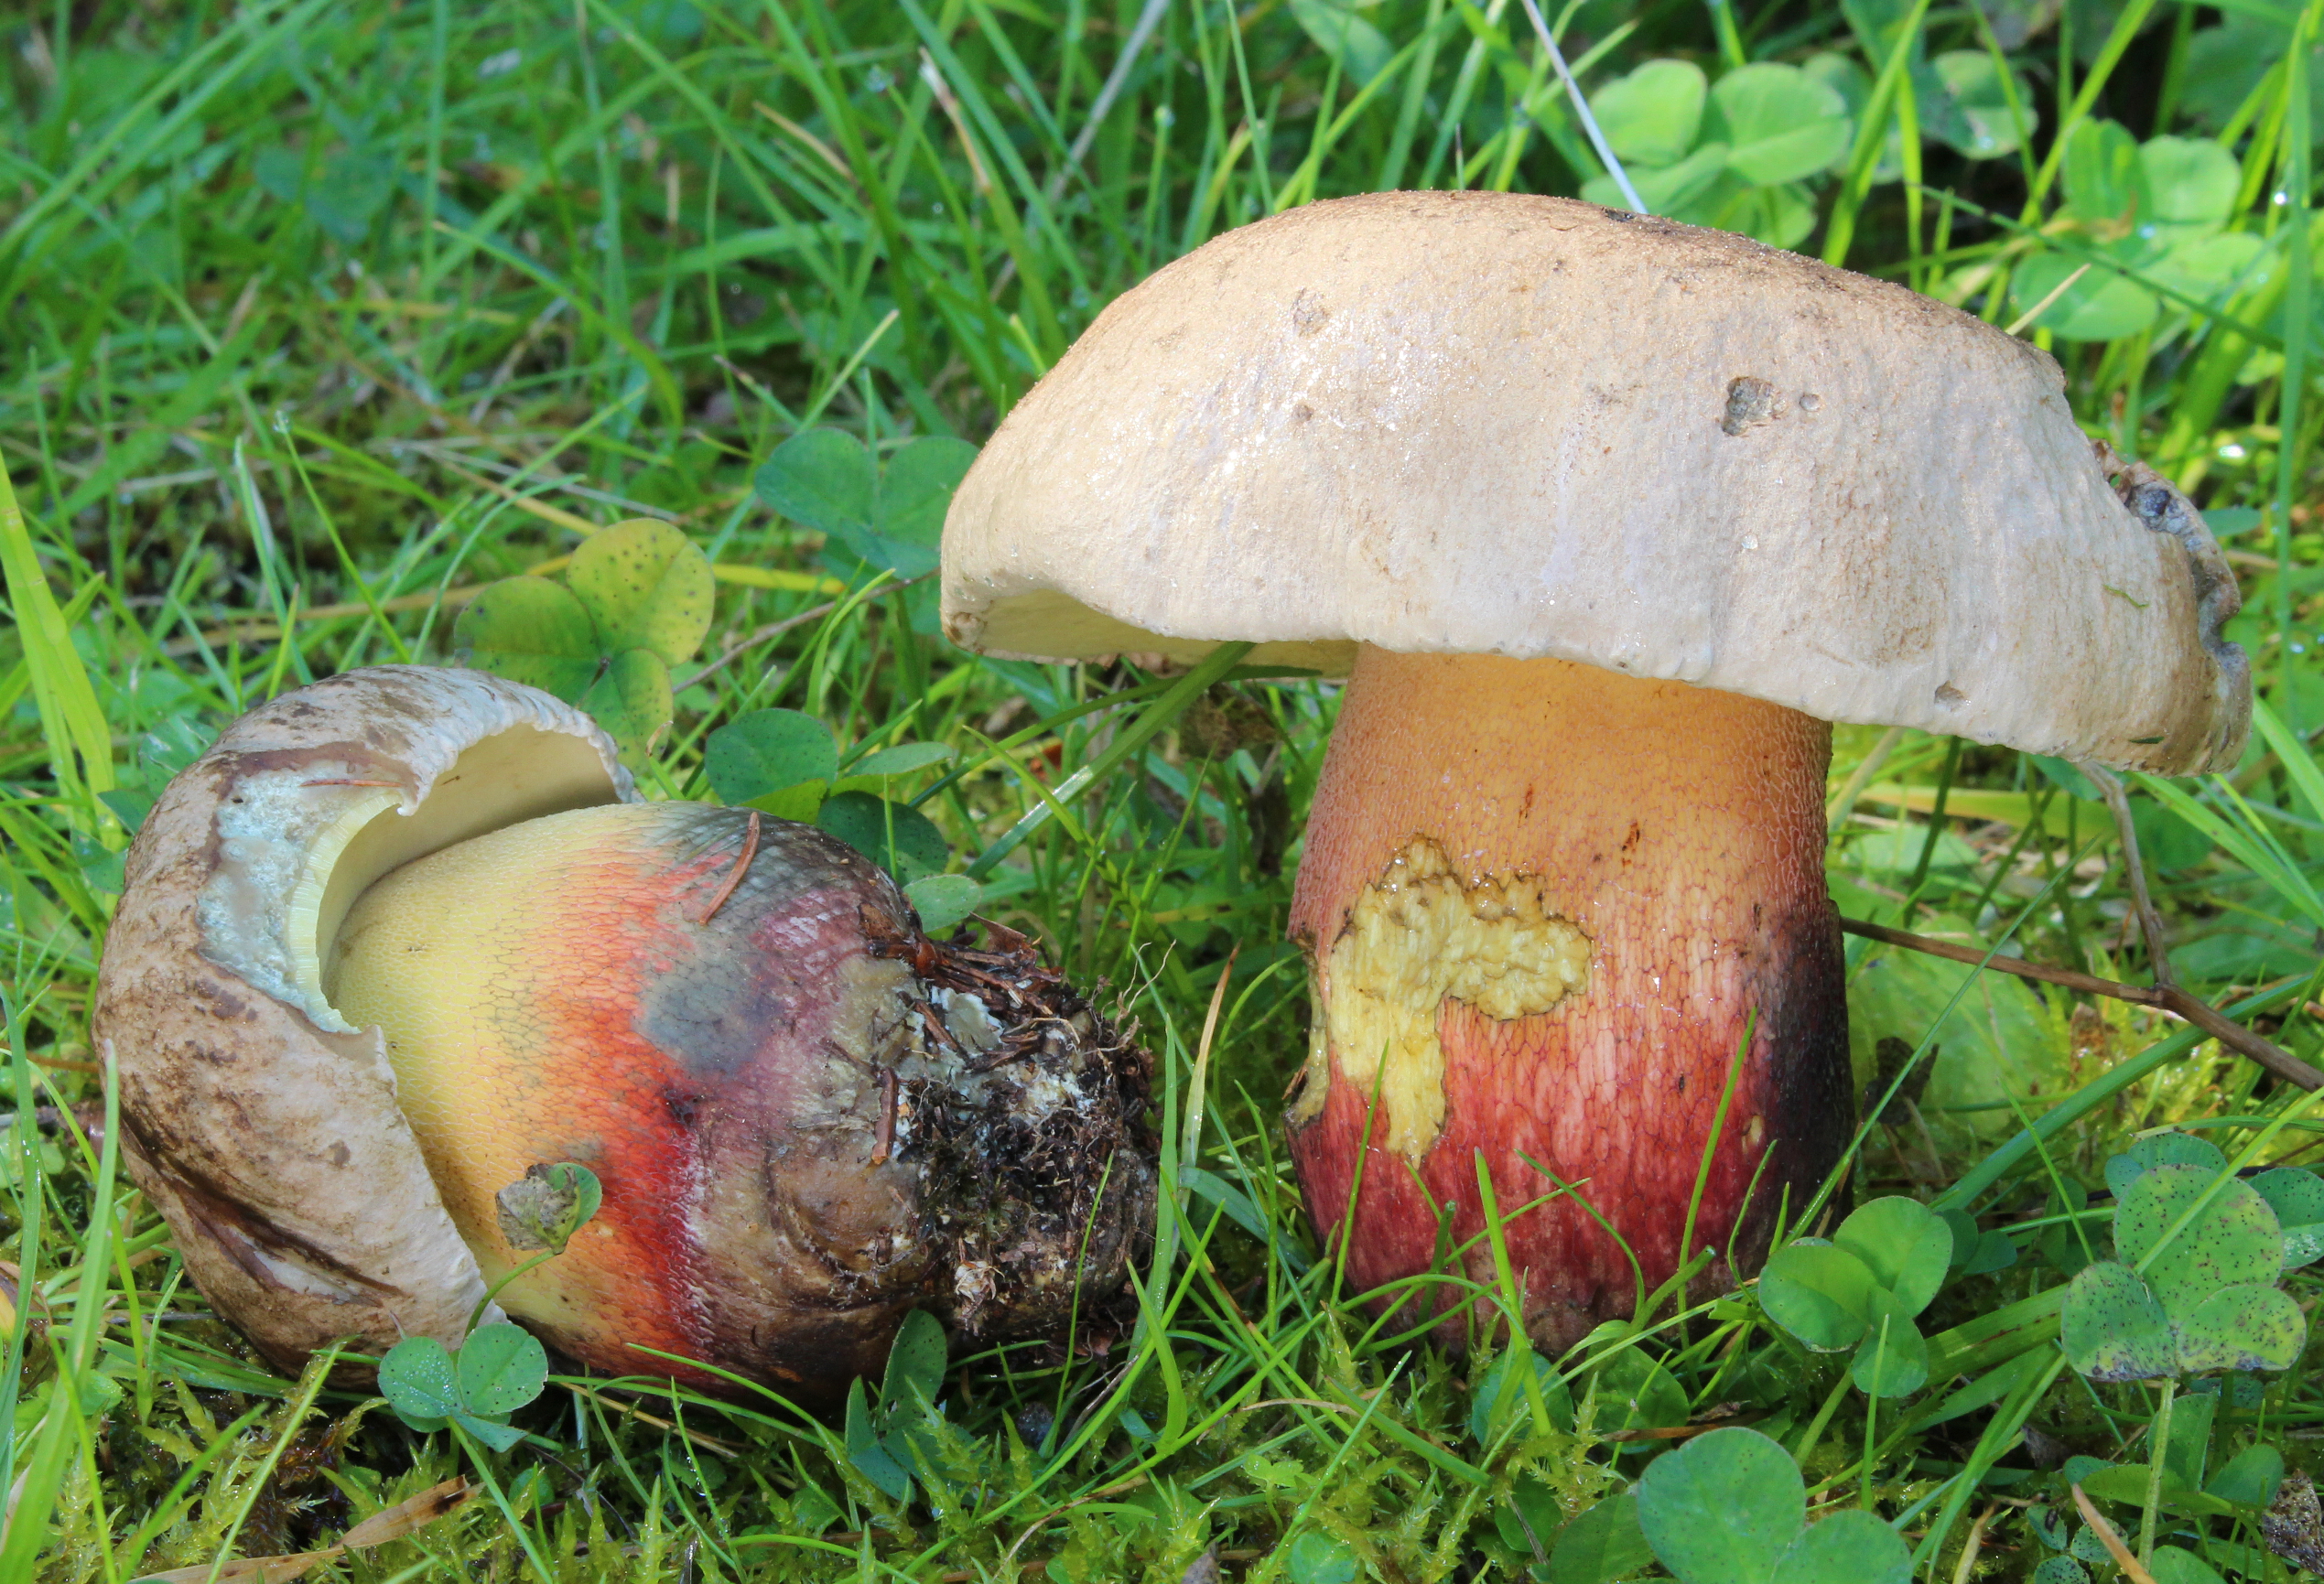
Zdroj fotografie · CC BY 3.0Caloboletus calopus
Hlavné rozdiely
Zámena s hríbom smrekovým (Boletus edulis) je v teréne možná najmä pri letmom pohľade zhora na mladé plodnice. Hríb smrekový sa odlišuje hnedým klobúkom, rúrkami bielymi až žltozelenými, ktoré po stlačení nemodrejú, svetlým hlúbikom bez stopy jasne červenej farby a miernou, príjemnou chuťou.
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
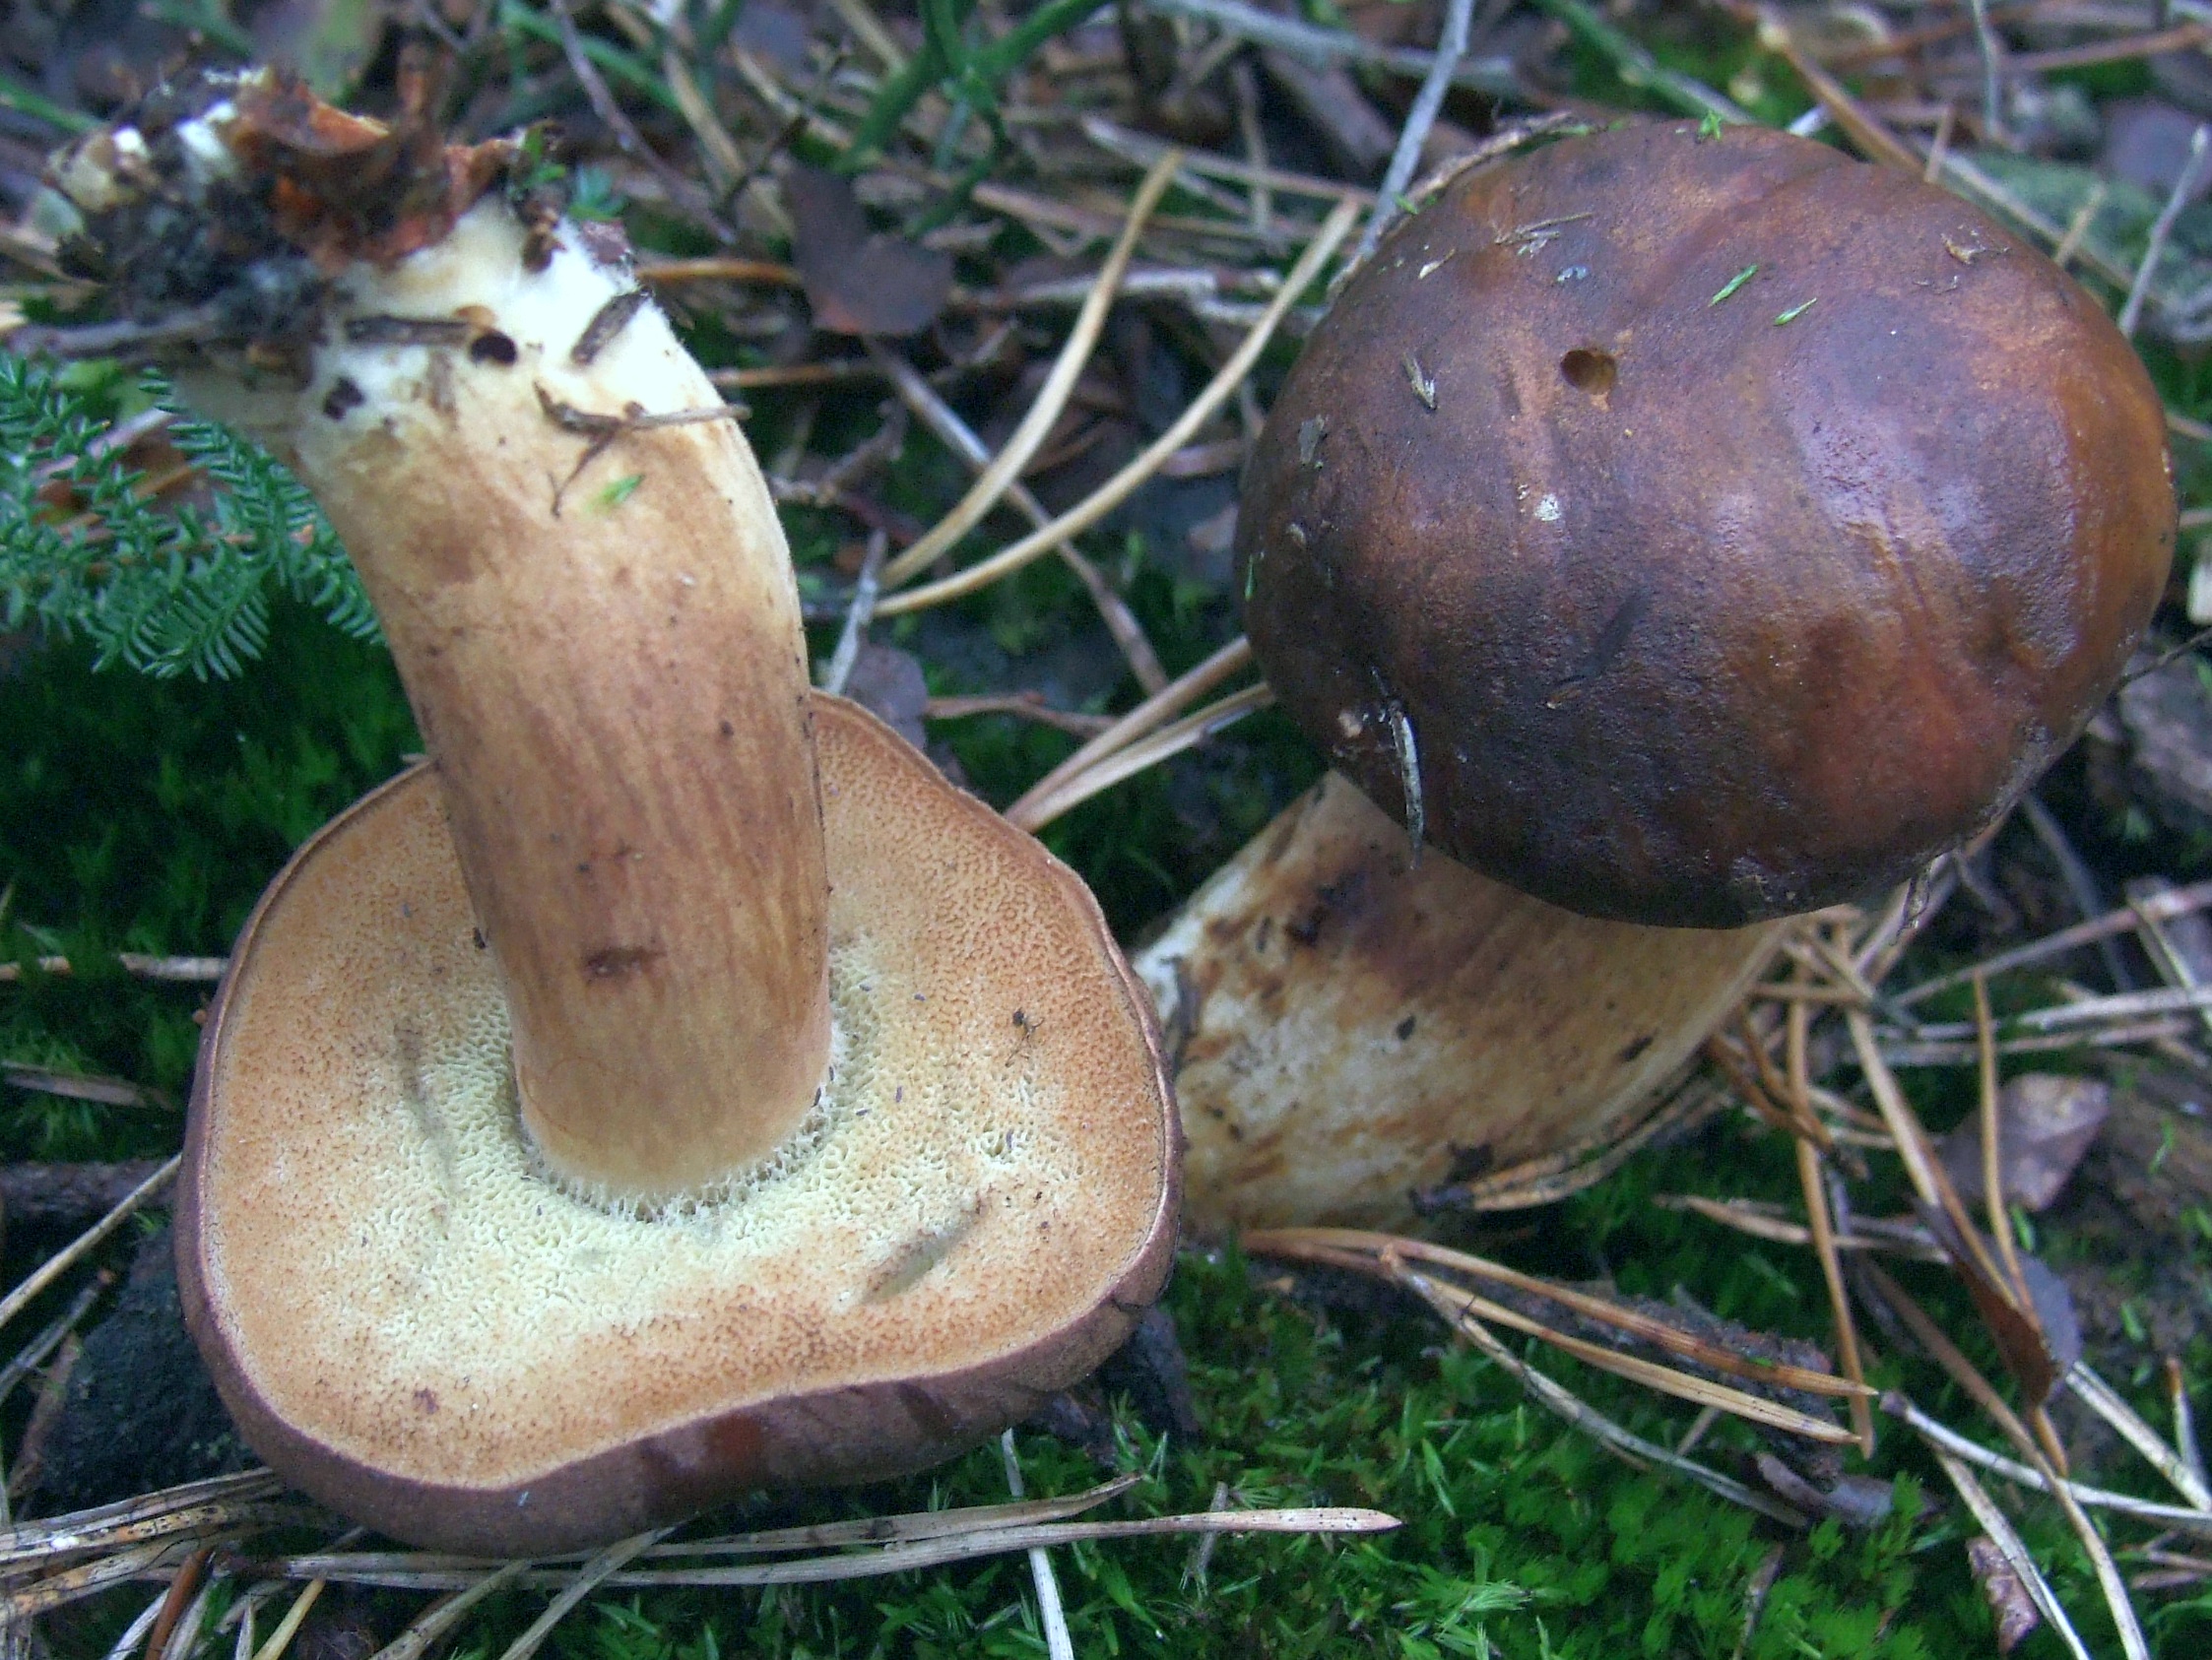
Zdroj fotografie · CC BY-SA 4.0Imleria badia
Hlavné rozdiely
Suchohríb hnedý (Imleria badia) a hríb smrekový (Boletus edulis) sú obľúbené jedlé huby. Hríb smrekový má hlúbik so svetlou sieťkou a póry spočiatku biele, s vekom žlté až žltoolivové, ktoré pod tlakom nemenia farbu. Jeho dužina zostáva po rozkrojení biela. Suchohríb hnedý má hlúbik hnedastý, bez sieťky, a póry pod tlakom výrazne modrajú. Dužina suchohríba po rozkrojení modrie, najmä v klobúku a nad rúrkami.
FAQ
Modrie hríb smrekový po rozkrojení?
Nie. Dužina hríba smrekového po rozkrojení nemení farbu – na kontakte so vzduchom nemodrie ani netmavne. Nezmenená farba na reze je dôležitým diagnostickým znakom.
Môže byť klobúk hríba slizký?
Áno. Počas vlhkého počasia býva klobúk klzký, lepkavý alebo slizký a lesklý a pri mladých plodniciach mierne lepkavý. Samotný povrch klobúka býva hladký alebo zvráskavený.
Má každý hríb smrekový tmavohnedý klobúk?
Nie. Farba klobúka býva premenlivá: od svetlohnedej cez orechovú po tmavohnedú a červenohnedú. V širokom poňatí druhu sa zohľadňujú aj formy s ešte svetlejším sfarbením.
Sú pravák a hríb smrekový to isté?
Pravák je hovorový názov pre hríb smrekový, avšak v bežnom používaní sa niekedy vzťahuje aj na niekoľko podobných druhov hríbov zbieraných hubármi.
Prečo má hríb raz biele a inokedy žltoolivové póry?
Závisí to od zrelosti plodnice. Pri mladých hubách sú póry biele, zatiaľ čo pri zrelých sa menia na žlté až žltoolivové. S vekom sa drobné, okrúhlasté póry navyše stávajú hranatými.
Zosilňuje sušenie vôňu hríba?
Áno. Čerstvé plodnice majú slabú hubovú vôňu, zatiaľ čo sušenie arómu výrazne zosilňuje. Usušený hríb vonia podstatne silnejšie a predstavuje tradičnú zložku poľských polievok a pirohov.
Aký veľký môže byť klobúk hríba smrekového?
V poľských zdrojoch Snowarski uvádza priemer 60–250 mm a český Tejkal 50–250 mm. Štúdie Muñoza a Korhonena zasa pri hríbe smrekovom zaznamenávajú klobúky dosahujúce až 300 mm (30 cm).
Ako odlíšiť hríb smrekový od podhríba žlčového?
Podhríb žlčový má tmavú, hrubú sieťku na hlúbiku a zrelé póry v ružovom odtieni. Pri hríbe je sieťka jemná, belavá alebo svetlohnedá a zrelé póry sú žlté až žltoolivové.
Kedy možno nájsť hríb smrekový?
Závisí to od regionálneho pohľadu. V poľských zdrojoch sa obdobie výskytu definuje ako leto a jeseň, zatiaľ čo v Česku huba plodí v opakovanom rozmedzí od júna do októbra.
Pod akými stromami rastie hríb smrekový?
Hríb smrekový rastie v ihličnatých, listnatých a zmiešaných lesoch. Vytvára mykorízne väzby s rôznymi stromami: zdroje tu uvádzajú smrek, jedľu, borovicu, buk a brezu.
Nadšenec
Spodná strana klobúka
- Dĺžka rúrok
- Dĺžka rúrok: 5–30 mm.
Názvy a história
- Obowiązująca nazwa taksonomiczna
- Boletus edulis Bull.
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách klobúk zdvihnite a prezrite si odtlačok.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: hnedý. Farba výtrusného prachu: zelený.
- Odtieň výtrusného prachu
- Odtieň výtrusného prachu: tmavoolivovohnedý. Odtieň výtrusného prachu: hnedoolivový.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: vretenovitý. Tvar výtrusu: pretiahnuto elipsoidný. Tvar výtrusu: vretenovitý. Tvar výtrusu: vretenovitý. Tvar výtrusu: elipsoidný.
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 12–19,5 µm, šírka 4–7 µm.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Ekológia a rozšírenie
- Pôdna reakcia
- Pôdna reakcia: kyslý.
- Vápnitosť pôdy
- Vápnitosť pôdy: nevápnitá.
- Mykorízni partneri
- Všeobecná väzba druhu: Mykorízni partneri: Picea (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Abies (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Pinus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Fagus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Betula (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Picea abies (všeobecný zoznam partnerov).
Nekulinárske využitie
Pokiaľ ide o mimokulinárske využitie hríba smrekového, vedecké zdroje (okrem iného publikácia v IMA Fungus, doi:10.1186/s43008-024-00156-7) zaznamenávajú ojedinelé lokálne etnomykologické správy. V terénnych výskumoch tradičných poznatkov o hubách bola zdokumentovaná informácia týkajúca sa ľudovej praxe lokálneho prikladania plodníc tohto druhu pri kožných ochoreniach.
Tento záznam predstavuje výlučne opis zaznamenaného etnomykologického podania a prvok lokálneho bylinkárskeho folklóru bez vedeckého potvrdenia biologickej účinnosti či liečivého pôsobenia. Súčasná mykologická a etnobiologická literatúra pristupuje k tejto zmienke iba ako k svedectvu o dávnych zvykoch, bez formulovania akýchkoľvek terapeutických či medicínskych odporúčaní alebo aplikačných receptúr. Akékoľvek mimokulinárske využitie hríba smrekového malo v porovnaní s jeho bežným potravinárskym určením iba okrajový a historický charakter.
História a kultúra
Hríb smrekový zaujíma zásadné miesto v európskej kultúre a lesnej tradícii, pričom je všeobecne považovaný za najprestížnejšiu hubu v hubárskych tradíciách. V histórii vedeckej mykológie bolo kľúčovým momentom formálne opísanie a pridelenie druhového názvu Boletus edulis francúzskym prírodovedcom Jeanom-Baptistom Bulliardom v roku 1782.
V poľskej literárnej tradícii sa motív hríba upevnil v III. knihe eposu „Pán Tadeáš“ od Adama Mickiewicza („Dvornosti“), kde sa v opise hubárčenia objavuje zmienka o hríbe nazývanom v básni „plukovníkom húb“. Tento odkaz však nemožno priamo stotožňovať s moderným, prísnym taxonomickým vymedzením druhu, ale s niekdajším kultúrnym vnímaním ušľachtilých lesných húb.
Význam tejto huby v ľudovej kultúre stredovýchodnej Európy potvrdzujú súčasné etnobiologické výskumy, napríklad analýzy tradícií uskutočnené na ukrajinsko-rumunskom pohraničí. Poukazujú na mimoriadnu trvácnosť vedomostí o hríbe v kolektívnej pamäti miestnych komunít. Táto huba nesie aj silnú sviatočnú a obradnú symboliku, keďže predstavuje tradičnú súčasť štedrovečerného stola ako symbol spätosti s prírodou.
Jedlosť a bezpečnosť
Hríb smrekový je všeobecne cenená jedlá huba s jemnou orieškovou chuťou a výraznou lesnou arómou, ktorá sa sušením ešte zintenzívňuje. Na konzumné účely sa zbierajú zdravé, čerstvé plodnice. Konzumácia starých, prezretých alebo plesňami napadnutých plodníc môže viesť k nešpecifickým otravám spôsobeným rozkladnými procesmi v pletivách. Štandardnou praxou pri príprave na konzumáciu je tepelná úprava huby (varenie, dusenie, smaženie), zatiaľ čo sušenie predstavuje metódu jej konzervácie.
Tradície konzumácie vykazujú regionálne odlišnosti. V Poľsku a v stredovýchodnej Európe je hríb smrekový základnou hubovou surovinou, tradične sušenou a marinovanou. V Taliansku, kde je známy ako porcino, tvorí tradičnú zložku dusených a smažených jedál. Vo Francúzsku sa pod názvom cèpe bežne využíva v regionálnej gastronómii, zatiaľ čo v západoeurópskych kuchyniach jeho popularita vzrástla pod vplyvom kulinárskych tradícií juhu kontinentu.
Biotop a výskyt
Hríb smrekový sa vyskytuje v miernom a boreálnom pásme severnej pologule a rastie v ihličnatých, listnatých aj zmiešaných lesoch. Ako ektomykorízna huba vytvára väzby s mnohými druhmi lesných drevín. Podľa taxonomicko-ekologických štúdií patria k jeho hlavným mykoríznym partnerom ihličnaté stromy vrátane smreka (Picea), borovice (Pinus) a jedle (Abies), ako aj listnaté stromy, predovšetkým dub (Quercus), buk (Fagus), breza (Betula) a gaštan (Castanea).
Druh osídľuje rôznorodé typy lesných pôd, najčastejšie kyslého charakteru, vrátane piesočnatých, piesočnato-hlinitých a humóznych podkladov, nezriedka v podraste s machmi a čučoriedkami. Vyskytuje sa v nížinách, ako aj v pahorkatinách a horských oblastiach.
V prehľadoch zdokumentované obdobia výskytu plodníc v strednej Európe zahŕňajú v Poľsku obdobie od júna do novembra (VI – XI), zatiaľ čo v Česku od júna do októbra (VI – X). Tieto rozsahy vymedzujú časový rámec zaznamenávania plodníc v teréne v závislosti od poveternostných podmienok, bez neodôvodneného vyzdvihovania mesačných vrcholov či regionálnych porovnávaní frekvencie výskytu.
Bádateľ
Jedlosť a kuchyňa
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlosť
- Jedlý — źródło oznaczenia
Źródło bez opisu bibliograficznego · Wartość: source assessment Jadalny; no advice to taste an unidentified specimen.
Źródło bez opisu bibliograficznego · Kuchyňské využití: jedlá houba; a species assessment, not an identification test.
- Kulinárske hodnotenie
- Veľmi chutný
Źródło bez opisu bibliograficznego · Wartość: jeden z najsmaczniejszych grzybów; qualitative source culinary assessment.
- Obchod
- Povolený na predaj
Obszar: PL
W polskim prawie borowik szlachetny jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Urzędowy status lub tekst aktu ELI · § 2 ust. 1; załącznik 1, pozycja 8, PDF str. 5; wymagania obrotu § 3–6 osobno
Vedecké názvy a taxonómia
- Platný vedecký názov
Boletus edulis Bull.
- Skoršie vedecké názvy
- 1789 — Suillus edulis (Bull.) Lam.
1796 — Boletus elephantinus With.
1801 — Boletus edulis var. elephantinus (With.) Pers.
1801 — Boletus edulis var. tuberosus Pers.
1805 — Boletus edulis var. communis Alb. & Schwein.
1814 — Boletus solidus Sowerby
1821 — Leccinum edule (Bull.) Gray
1821 — Leccinum elephantinum (With.) Gray
1825 — Boletus esculentus var. albus Pers.
1863 — Boletus citrinus A. Venturi
1882 — Tubiporus edulis (Bull.) P. Karst.
1886 — Dictyopus edulis (Bull.) Quél.
1889 — Boletus edulis var. clavipes Peck
1892 — Boletus edulis var. elephantinus Massee
1892 — Boletus edulis var. laevipes Massee
1898 — Suillus citrinus Kuntze
1918 — Boletus edulis var. pseudopurpureus Murr
1921 — Boletus edulis var. abietis Schiemek
1921 — Boletus edulis var. quercus Schiemek
1931 — Boletus edulis var. albus (Pers.) E.-J. Gilbert
1931 — Boletus edulis var. citrinus Pelt. ex E.-J. Gilbert
1933 — Boletus edulis subsp. euedulis Maire
1947 — Boletus edulis subsp. clavipes (Peck) Singer
1947 — Boletus edulis subsp. euedulis (Maire) Singer
1951 — Boletus slovenicus Smotl.
1966 — Boletus edulis f. arcticus Vassilkov
1966 — Boletus edulis f. betulicola Vassilkov
1966 — Boletus edulis f. citrinus (Pelt. ex E.-J. Gilbert) Vassilkov
1966 — Boletus edulis f. laevipes (Massee) Vassilkov
1966 — Boletus edulis f. pseudopurpureus (Murr) Vassilkov
1966 — Boletus edulis f. quercicola Vassilkov
1966 — Boletus edulis f. roseipes Vassilkov
1966 — Boletus edulis f. subaereus Vassilkov
1966 — Boletus edulis f. tardus Vassilkov
1971 — Boletus edulis var. ochraceus A.H. Sm. & Thiers
1974 — Boletus betulicola (Vassilkov) Pilát & Dermek
1974 — Boletus clavipes (Peck) Pilát & Dermek
1974 — Boletus edulis subsp. trisporus U.K. Duncan & Watling
1978 [1977] — Boletus quercicola (Vassilkov) Singer
1983 — Boletus edulis var. arenarius H. Engel
1986 — Boletus venturii Bon
1988 — Boletus persoonii Bon
1994 — Boletus edulis subsp. betulicola (Vassilkov) Hlaváček
1994 — Boletus edulis subsp. slovenicus (Smotl.) Hlaváček
1994 — Boletus edulis var. arcticus (Vassilkov) Hlaváček
1994 — Boletus reticulatus var. albus (Pers.) Hlaváček
1994 — Boletus reticulatus var. citrinus Hlaváček
2005 — Boletus edulis f. albus (Pers.) J.A. Muñoz
2005 — Boletus edulis f. citrinus J.A. Muñoz
2008 — Boletus edulis var. grandedulis D. Arora & Simonini
Tubiporus edulis subsp. euedulis Maire[22]
Boletus edulis Bull. należy do rodziny Boletaceae i rzędu Boletales. W rejestrze Species Fungorum (rekord 356530) jako nazwę przyjętą wskazano publikację w Herbier de la France (tom 2, tablica 60) z datą 1782 [1781–82]. W układzie systematycznym takson zaliczany jest do Basidiomycota, Agaricomycetes oraz Agaricomycetidae. Zapis bibliograficzny samej nazwy stanowi element historii taksonomii, odrębny od współczesnych ustaleń dotyczących biologii gatunku.
Historia nazewnictwa gatunku obejmuje formalne przeniesienia epitetu gatunkowego do innych rodzajów: Suillus edulis (Bull.) Lam., Leccinum edule (Bull.) Gray, Tubiporus edulis (Bull.) P. Karst. oraz Dictyopus edulis (Bull.) Quél. Rejestry mikologiczne notują ponadto liczne nazwy odmian, form i synonimów, z których nie każda stanowi kombinację opartą na tym samym typie. Dawna nazwa Suillus esculentus P. Micheli z 1729 roku reprezentuje nazewnictwo przedsystematyczne i jej status wymaga odrębnej oceny historyczno-nomenklatorycznej.
W polskim atlasie Snowarskiego w zestawieniu nazw angielskich wymieniono formy King Bolete, Cep oraz Porcini. Zapis Porcini odnotowano w tym źródle w grupie określeń angielskich, co nie stanowi udokumentowania jego włoskiego rodowodu językowego. Z kolei niemiecka nazwa Steinpilz nie została w tym wykazie potwierdzona.
Rozsah taxónu a obmedzenia určovania
Europejska rewizja taksonomiczna przeprowadzona przez Beugelsdijka i współpracowników w 2008 roku połączyła analizę cech morfologicznych z badaniem markerów molekularnych ITS oraz GAPDH. W analizowanym materiale wyodrębniono cztery wyraźne linie odpowiadające gatunkom: B. edulis, B. aereus, B. pinophilus i B. reticulatus. Jednocześnie kolekcje opisywane wcześniej jako betulicola, persoonii, quercicola, venturii oraz wyróżnione morfotypy A–C wykazały znikomą zmienność obu markerów i zostały włączone do szeroko ujętego B. edulis. Wnioski te opierają się na zbadanych kolekcjach europejskich i nie rozstrzygają automatycznie statusu wszystkich nazw z historycznych rejestrów ani populacji spoza Europy.
W analizie mikroskopowej skórki kapelusza typowego B. edulis szerokość elementów końcowych wynosi 4,0–19 µm, z obecnością pigmentu wewnątrzkomórkowego (dane van der Linde z 2004 r. przytoczone w rewizji z 2008 r.). U morfotypu B elementy końcowe mierzą 12–50 × 4,5–15 µm, a u morfotypu C są lekko poszerzone i osiągają do 15 µm szerokości.
W analizach filogenetycznych Beugelsdijka i współpracowników badano sekwencje ITS oraz GAPDH. Długości wyrównań wynosiły odpowiednio 860 i 496 pozycji (łącznie 1356 pozycji), z czego 96 było informatywnych w sensie parsymonii (57 w ITS i 39 w GAPDH). Test jednorodności podziałów wykazał brak sprzeczności między markerami (P = 0,560). Analiza maksymalnej parsymonii wygenerowała 6600 drzew o długości 305 kroków. Dodatkowe zestawienie ITS z sekwencjami Leonardiego liczyło 964 pozycje (157 informatywnych) i dało ponad 10 000 drzew o długości 214 kroków.
Metodyka badań molekularnych obejmowała amplifikację rejonu ITS za pomocą starterów ITS5 i ITS4 w objętości 25 µl (z udziałem 2 µl matrycowego DNA). Warunki reakcji PCR: wstępna denaturacja w 94 °C przez 4 minuty, 37 cykli złożonych z denaturacji w 94 °C (1 min), przyłączania starterów w 52 °C (1 min) i wydłużania w 72 °C (1 min), oraz końcowe wydłużanie w 72 °C przez 5 minut. Analizowano również markery GAPDH, a sekwencjonowanie prowadzono na sekwenatorze automatycznym ABI 377.
Ekológia a rozšírenie
Laboratórna diagnostika
Dane ustrukturyzowane
Bazídiá
Kaulocystidy
Pokožka klobúka
Reakcie s činidlami
- Amyloidná reakcia
- Amyloidná reakcia: negatívny. [14]
Výtrusy
- Farba výtrusov pod mikroskopom
- Farba výtrusov pod mikroskopom: žltohnedý. [20]
- Kvapky vo vnútri výtrusu
- Kvapky vo vnútri výtrusu: prítomný. [21]
- Dĺžka výtrusu
- Dĺžka výtrusu: 16–19 µm. [20]
Dĺžka výtrusu: 12–18 µm. [17]
Dĺžka výtrusu: 12–19,5 µm. [14]
Dĺžka výtrusu: 14–18 µm. [24]
Dĺžka výtrusu: 13–16,5 µm. [21] - Pomer dĺžky a šírky výtrusu
- Pomer dĺžky a šírky výtrusu: 2,5–3,9. [14]
Pomer dĺžky a šírky výtrusu: 2,8–3,6. [21]
Pomer dĺžky a šírky výtrusu: 2,7–3,4. [20] - Tvar výtrusu
- Tvar výtrusu: vretenovitý. [24]
Tvar výtrusu: pretiahnuto elipsoidný. [17]
Tvar výtrusu: vretenovitý. [17]
Tvar výtrusu: vretenovitý. [21]
Tvar výtrusu: elipsoidný. [21]
Tvar výtrusu: vretenovitý. [20] - Povrch výtrusu
- Povrch výtrusu: hladký. [24]
Povrch výtrusu: hladký. [17]
Povrch výtrusu: hladký. [21]
Povrch výtrusu: hladký. [20] - Hrúbka steny výtrusu
- Hrúbka steny výtrusu: hrubostenný. [20]
Materiál a metódy výskumu
- Výsledky zaznamenané v zdrojoch — Dĺžka koncovej bunky pokožky klobúka
- Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 21–60 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 15–30 µm [20] - Výsledky zaznamenané v zdrojoch — Šírka koncovej bunky pokožky klobúka
- Materiał badania: B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test. 4–19 µm [15]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–15 µm [20]
Materiał badania: Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified. 6,5–12 µm [21] - Výsledky zaznamenané v zdrojoch — Dĺžka výtrusu
- 14–18 µm [24]
12–18 µm [17]
13–16,5 µm [21]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 16–19 µm [20]
12–19,5 µm [14] - Výsledky zaznamenané v zdrojoch — Pomer dĺžky a šírky výtrusu
- 2,5–3,9 [14]
Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 2,7–3,4 [20]
2,8–3,6 [21] - Výsledky zaznamenané v zdrojoch — Šírka výtrusu
- Materiał badania: Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form. Materiał suszony (przygotowanie opisano w Metodach): 5–6 µm [20]
4–7 µm [14]
4–6 µm [17]
4,5–7 µm [24]
4,3–5,5 µm [21]
Metody i zapisy źródłowe — Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.
Stan materiału: suszony.
Pochodzenie materiału: Fennoscandia; seven typical B.edulis collections, separately from France Fagus-associated form..
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: pure water; no softening or colouring medium. Opis metody w źródle: Leitz Dialux, Pl Apo Oel100/1.32 oil objective; drawing tube2000×; measurements from drawings corrected to1/2µm. Mature spores from pore hymenium; stipe spores excluded. Q from individual paired spores. Mature caulocystidia from stem net; cap scalps at1/3radius from edge.
Liczba zarodników na jednej podstawce; Długość podstawki; Kształt podstawki; Szerokość podstawki; Długość kaulocystyd; Kształt kaulocystyd; Szerokość kaulocystyd; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Barwa zarodnika w mikroskopie; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika; Szerokość zarodnika — zapis źródłowy: „Typical B.edulis, 350 mature hymenophoral spores from 7 collections; Fennoscandia. Each collection one fruitbody; do not assign this N to other microscopic structures or to Fagus form.” [20]
Metody i zapisy źródłowe — Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact focal species description, following and separate from generic Boletus introduction. Microscopy medium/N/collection unreported.” [14]
Metody i zapisy źródłowe — Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.
Identyfikacja kropli: nierozstrzygnięta.
Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza; Krople wewnątrz zarodnika; Długość zarodnika; Iloraz długości i szerokości zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Author species account; microscopic method and specific vouchers unreported; guttules chemically unidentified.” [21]
Metody i zapisy źródłowe — B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „B.edulis var.edulis, Table2; terminal elements 4–19µm wide, intracellular pigment, colour of pigment not specified. Not pinophilus KOH test.” [15]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [24]
Metody i zapisy źródłowe — Species account; individual spore range, exact measurement extent/method/N unreported.
Długość zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Szerokość zarodnika — zapis źródłowy: „Species account; individual spore range, exact measurement extent/method/N unreported.” [17]
Overenie výskytu — rozsah a obmedzenia
Materiał: Marek Snowarski podaje własne kolekcje z okolic Milicza; geograficzny opis Dolnego Śląska pozostaje zakresem źródłowym.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Príprava materiálu na mikroskopiu
- Materiał suszony. Mikroskop Leitz Dialux, obiektyw olejowy Pl Apo Oel 100/1,32 i tubus rysunkowy przy 2000×; pomiary z rysunków korygowano do 0,5 µm. Dojrzałe zarodniki pobierano z hymenium porów, z wyłączeniem zarodników z trzonu. Q pochodzi z długości i szerokości tego samego zarodnika. Dojrzałe kaulocystydy pobierano z siateczki trzonu, a skórkę kapelusza w odległości 1/3 promienia od brzegu. [20]
Rozsah spracovania
Pred dokončením vyžaduje záznam doplnenie alebo vyrovnanie.
- Hľadanie oblastí výskytu si vyžaduje vyúčtovanie.
- Väzby predchádzajúcich zistení si vyžadujú opätovné preverenie.
- Nové zdroje si vyžadujú vyhodnotenie informácií zaznamenaných počas prehľadu.
Právny základ a rozsah hodnotenia
Najdôležitejšie látky a ich účinok
W badaniu laboratoryjnym opublikowanym w 2024 roku przez Quero i współpracowników analizowano młode owocniki borowika szlachetnego zebrane w mieszanym lesie sosnowo-dębowym w rejonie Albarracín (prowincja Teruel w Hiszpanii). Badane owocniki miały wyrównaną wielkość i masę świeżą około 70 g. Po 4 dniach liofilizacji wilgotność resztkowa surowca wynosiła około 4%.
Ekstrakt przygotowano z 15 g suchego surowca przy użyciu 150 ml 70-procentowego roztworu etanolu. Proces prowadzono przez 30 minut w temperaturze 55 °C, z mieszaniem 150 obr./min, przy natężeniu pola elektrycznego 13 V/cm i częstotliwości 25 kHz. Zastosowano reaktor o pojemności 250 ml z elektrodami w odstępie 5 cm; przewodność środowiska po 5 minutach mieszania wynosiła 2,1 mS/cm. Następnie mieszaninę wirowano przy 8000 g przez 10 minut w temperaturze 10 °C i filtrowano przez sączek 10 µm. Otrzymany ekstrakt, przechowywany w −20 °C, uzyskano z wydajnością około 32%.
Podstawowy skład chemiczny suchej masy owocnika wynosił: węglowodany 58,1 ± 2,8%, białko 19,7 ± 0,9% (oznaczone metodą Kjeldahla przy współczynniku przeliczeniowym azotu 4,45), tłuszcz 2,4 ± 0,1% (ekstrakcja aparatem Soxhleta z użyciem eteru naftowego) oraz popiół 5,4 ± 0,1% (spalanie w 575 °C). Wartość energetyczna wynosiła 333 kcal/100 g suchej masy. Udział frakcji rozpuszczalnej w wodzie wynosił 36,8 ± 0,3%, a we frakcji etanolowej 43,5 ± 0,5%.
Analiza składu mineralnego suchego owocnika metodą ICP-AES (po mineralizacji w kwasie azotowym) wykazała zawartości pierwiastków (w mg/kg suchej masy): potas (K) 21 500 ± 471, fosfor (P) 4039 ± 69, magnez (Mg) 645 ± 20, sód (Na) 614 ± 19, wapń (Ca) 138 ± 8, glin (Al) 110 ± 6, cynk (Zn) 106 ± 14, żelazo (Fe) 66 ± 9, selen (Se) 62 ± 7, mangan (Mn) 17 ± 0,4, miedź (Cu) 13 ± 0,3, bar (Ba) 6,5 ± 0,2 oraz nikiel (Ni) 5,4 ± 0,1.
W suchym ekstrakcie oznaczono ogólną zawartość związków fenolowych na poziomie 79 ± 4 mg równoważnika kwasu galusowego/g oraz flawonoidów 7,9 ± 0,9 mg równoważnika katechiny/g. W testach aktywności antyoksydacyjnej in vitro uzyskano wyniki: w teście FRAP 103 ± 6 µmol Fe²⁺/g, w teście DPPH 17 ± 0,1 µmol równoważnika Troloxu/g oraz w teście ABTS 52 ± 2,5 µmol równoważnika Troloxu/g.
Profil związków polifenolowych oznaczony metodą HPLC-DAD wykazał w suchym ekstrakcie obecność (w µg/g): kwasu elagowego 532 ± 44, rutyny 465 ± 35, taksyfoliny 259 ± 20, kwasu cynamonowego 172 ± 33, kwercetyny 99 ± 7, kwasu rozmarynowego 97 ± 5, kwasu ferulowego 85 ± 6, kwasu 2,4-dihydroksybenzoesowego 53 ± 5 oraz kempferolu 1,4 ± 0,2. Rozdział prowadzono na kolumnie C18 w temperaturze 40 °C przy przepływie fazy (woda z 0,1% kwasu mrówkowego i acetonitryl) 0,4 ml/min i objętości nastrzyku 5 µl.
W analizie cukrów metodą HPLC z detekcją refraktometryczną (kolumna w 60 °C, eluent 3 mM H₂SO₄ o przepływie 0,6 ml/min, detektor w 35 °C) oznaczono w suchym ekstrakcie (w mg/g): trehalozę 341 ± 0,1, ramnozę 51 ± 6, mannitol 23 ± 0,5, glukozę 16,6 ± 0,3 oraz fruktozę 6,7 ± 0,2. Podana w publikacji łączna zawartość cukrów wynosi 437,5 mg/g, natomiast suma poszczególnych wartości średnich wynosi 438,3 mg/g.
Zawartość pierwiastków w suchym ekstrakcie oznaczona metodą ICP-AES wynosiła (w mg/kg): potas 27 691,9 ± 156, fosfor 3234,3 ± 112, sód 1416 ± 66, magnez 572,4 ± 36, wapń 139,7 ± 13, cynk 49,8 ± 5,1, selen 26,9 ± 1,2, miedź 12,8 ± 1,1, żelazo 12,7 ± 2,3, mangan 4,1 ± 0,4 oraz nikiel 2,4 ± 0,1. Poziom baru w ekstrakcie znajdował się poniżej granicy oznaczalności metody.
W badaniach na liniach komórkowych raka jelita grubego Caco-2 TC7 (hodowanych w 37 °C, w atmosferze 5% CO₂, na pożywce DMEM z 20% surowicy płodowej bydlęcej FBS) oceniano wpływ ekstraktu w teście żywotności z rezazuryną. Dla komórek niezróżnicowanych inkubowanych przez 24, 48 i 72 godziny w stężeniach 250–2000 µg/ml wartości IC₅₀ wynosiły odpowiednio: >2000 µg/ml, 1880 ± 18 µg/ml oraz 1509 ± 43 µg/ml.
W testach mechanistycznych prowadzonych przy stężeniu 1500 µg/ml przez 48 godzin odnotowano zatrzymanie cyklu komórkowego w fazie G₀/G₁ oraz spadek udziału komórek w fazie S. Zaobserwowano również wskaźniki apoptozy w teście aneksyna V-FITC/jodek propidyny, depolaryzację błony mitochondrialnej oraz wzrost aktywności kaspazy 3.
Obserwację pęcherzyków autofagosomalnych prowadzono po inkubacji z ekstraktem w stężeniach 750 i 1500 µg/ml przez 24 godziny. W pomiarach poziomu reaktywnych form tlenu (stężenia 750, 1500 i 3000 µg/ml przez 24 lub 48 godzin) wykazano działanie prooksydacyjne przy stężeniu 3000 µg/ml po 24 godzinach oraz przy 1500 µg/ml po 48 godzinach.
W teście enzymatycznym z rekombinowaną reduktazą tioredoksynową 1 i odczynnikiem DTNB mierzono absorbancję przy 412 nm, wykazując obniżenie aktywności enzymu pod wpływem ekstraktu. W hodowli komórek Caco-2 TC7 ekspresja genów enzymów prozapalnych iNOS i COX-2 w komórkach niezróżnicowanych była wyjściowo odpowiednio 2,9 ± 1,8 oraz 23,8 ± 1,1 razy wyższa niż w zróżnicowanych. Zastosowanie ekstraktu w stężeniu 1500 µg/ml przez 48 godzin obniżyło poziom ekspresji obu badanych markerów (ocena metodą RT-qPCR oraz dodatkowo immunofluorescencji dla COX-2).
W zróżnicowanych komórkach Caco-2 preinkubowanych z ekstraktem przez 24 godziny w stężeniach 750, 1500 lub 3000 µg/ml, a następnie poddanych 20-minutowemu działaniu nadtlenku wodoru w stężeniu 80 mM, odnotowano osłabienie stresu oksydacyjnego. Jednocześnie najwyższe stężenie ekstraktu powodowało spadek żywotności komórek.
Wszystkie analizy biochemiczne i komórkowe w pracy Quero i współpracowników wykonano w co najmniej trzech powtórzeniach, stosując analizę wariancji ANOVA z testem post-hoc Bonferroniego (istotność przy p < 0,05). Doświadczenia te charakteryzują właściwości ekstraktu w warunkach laboratoryjnych i na modelach komórkowych in vitro.
Owocniki poddano mrożeniu w −20 °C przez tydzień, blanszowaniu w wodzie bez dodatku soli, marynowaniu w zalewie z 10% octu spirytusowego rozcieńczonego w proporcji 1:4 lub namaczaniu sproszkowanego suszu (ok. 1 g proszku w 50 ml przegotowanej, ostudzonej wody przez 24 godziny w temperaturze pokojowej). Aktywność izotopów promieniotwórczych ¹³⁷Cs i ⁴⁰K mierzono za pomocą spektrometrii gamma z detektorem germanowym HPGe, wyliczając stężenie potasu z aktywności ⁴⁰K.
Aktywność ¹³⁷Cs w suchej masie (Bq/kg), podana kolejno dla kapeluszy, trzonów oraz całych owocników, wynosiła: w surowcu świeżym 370 ± 7 / 130 ± 4 / 270 ± 6; po blanszowaniu świeżych grzybów 160 ± 4 / 65 ± 5 / 120 ± 4; po blanszowaniu i marynowaniu 59 ± 3 / 24 ± 1 / 45 ± 2; po wymoczeniu wodnym suszu 18 ± 2 / 7,2 ± 1 / 14 ± 1; po blanszowaniu owocników uprzednio zamrożonych 180 ± 3 / 44 ± 3 / 130 ± 3; po blanszowaniu i marynowaniu owocników mrożonych 48 ± 2 / <9,3 / ok. 31. Wartość „<9,3” oznacza poziom poniżej granicy oznaczalności detektora.
Aktywność ⁴⁰K w suchej masie (Bq/kg) dla tych samych wariantów i w tej samej kolejności (kapelusze / trzony / całość) wynosiła: w surowcu wyjściowym 750 ± 32 / 340 ± 50 / 590 ± 39; po blanszowaniu świeżych 520 ± 39 / 200 ± 97 / 390 ± 62; po marynowaniu świeżych 97 ± 36 / 46 ± 18 / 77 ± 29; po namoczeniu suszu 90 ± 50 / 43 ± 23 / 71 ± 39; po blanszowaniu mrożonych 420 ± 31 / 190 ± 70 / 330 ± 47; po marynowaniu mrożonych 150 ± 40 / 68 ± 19 / 120 ± 32. Wyniki te wskazują, że procesy obróbki cieplnej i moczenia powodują wymywanie również naturalnego potasu.
Aktywność ¹³⁷Cs w odniesieniu do mokrej masy (Bq/kg) w poszczególnych frakcjach (kapelusze / trzony / całość) wynosiła: w świeżych owocnikach 37 ± 1 / 13 ± 0 / 27 ± 1; po blanszowaniu świeżych 22 ± 1 / 9 ± 0,7 / 17 ± 1; po marynowaniu świeżych 8,1 ± 0,4 / 3,3 ± 0,1 / 6,2 ± 0,3; po namoczeniu suszu 1,8 ± 0,2 / 0,72 ± 0,1 / 1,4 ± 0,2; po blanszowaniu mrożonych 25 ± 1 / 1,9 ± 0,1 / 18 ± 1; po marynowaniu mrożonych 6,6 ± 0,3 / <1,3 / ok. 4,3.
Aktywność ⁴⁰K w odniesieniu do mokrej masy (Bq/kg) dla kolejnych wariantów obróbki wynosiła: w stanie świeżym 75 ± 3 / 34 ± 5 / 59 ± 4; po blanszowaniu świeżych 72 ± 5 / 28 ± 14 / 54 ± 9; po marynowaniu świeżych 13 ± 5 / 6,3 ± 2,5 / 11 ± 4; po namoczeniu suszu 9 ± 5 / 4,3 ± 2,3 / 7,1 ± 3,9; po blanszowaniu mrożonych 58 ± 4 / 26 ± 10 / 46 ± 6; po marynowaniu mrożonych 21 ± 6 / 9,4 ± 2,6 / 17 ± 5.
W publikacji źródłowej odnotowano nieścisłości w wyliczeniach spadków procentowych: dla ¹³⁷Cs w marynowanych trzonach podano spadek −31%, podczas gdy zmiana z 13 na 3,3 Bq/kg odpowiada obniżeniu o około −74,6%; dla całych owocników mrożonych i blanszowanych podano −67%, podczas gdy przejście z 27 na 18 Bq/kg oznacza spadek o −33,3%. Podobnie dla ⁴⁰K w blanszowanych kapeluszach wydrukowano spadek −40%, podczas gdy wartości 750 i 520 Bq/kg odpowiadają redukcji o ok. −30,7%.
W danych źródłowych stwierdzono również rozbieżności bilansowe: w przypisie tabeli podano średnią wilgotność 90,44%, co nie odpowiada bezpośrednio relacji części par pomiarowych (np. wartości 120 Bq/kg w suchej masie i 17 Bq/kg w mokrej masie wskazują na ok. 14,2% suchej masy, a nie 9,56%). W dyskusji odnotowano ponadto zapis „1900 Bq/kg ww” przy zestawieniu z poziomem potasu 14 000 mg/kg suchej masy oraz zdublowane oznaczenie suchej masy przy przeliczaniu potasu po namaczaniu.
W badaniu handlowych przetworów grzybowych zakupionych w Trójmieście w 2016 roku wykazano dla marynowanego B. edulis: aktywność ¹³⁷Cs na poziomie 10 ± 1 Bq/kg suchej masy i 1,5 ± 0,1 Bq/kg mokrej masy; aktywność ⁴⁰K 50 ± 10 Bq/kg suchej masy i 7,3 ± 1,5 Bq/kg mokrej masy oraz zawartość potasu 1600 ± 300 mg/kg suchej masy i 230 ± 50 mg/kg mokrej masy. W próbach porównawczych podgrzybek brunatny (Imleria badia) zawierał odpowiednio: ¹³⁷Cs 34 ± 1 / 4,6 ± 0,1 Bq/kg, ⁴⁰K 95 ± 11 / 13 ± 2 Bq/kg i potas 3100 ± 400 / 410 ± 60 mg/kg, natomiast maślak zwyczajny (Suillus luteus): ¹³⁷Cs <0,53 / <0,07 Bq/kg, ⁴⁰K 81 ± 11 / 11 ± 1 Bq/kg i potas 2600 ± 400 / 350 ± 30 mg/kg.
Biotop a výskyt
Biotop, oblasť a ročné obdobie
W warunkach Europy Środkowej owocnikowanie trwa zazwyczaj od czerwca do października, od nizin po tereny górskie. Grzyb występuje w lasach iglastych i mieszanych, szczególnie w młodszych drzewostanach świerkowych oraz na ich skrajach, a także poza zwartym drzewostanem w strefie korzeniowej drzew. Preferuje gleby kwaśne.
W bazie Czeskiego Towarzystwa Mykologicznego odnotowano dziewięć konkretnych znalezisk terenowych: w Kraju Środkowoczeskim (Středočeský kraj) owocniki rejestrowano 23 sierpnia 2019 r., 29 października 2020 r., dwa stanowiska 13 września 2022 r., 17 września 2022 r., 20 listopada 2023 r. oraz 6 października 2024 r. Ponadto odnotowano zbiory w Kraju Południowoczeskim (Jihočeský kraj) 14 lipca 2022 r. i Kraju Pilzneńskim (Plzeňský kraj) 6 września 2020 r. Obserwacja z końca listopada wskazuje na możliwość późnego owocnikowania przy sprzyjających warunkach pogodowych.
W polskim atlasie fotograficznym Snowarskiego udokumentowano występowanie borowika szlachetnego m.in. w rejonie Milicza, w Puszczy Białowieskiej, w Kotlinie Kłodzkiej oraz w czeskich Górach Orlickich. Miejsca te stanowią przykłady potwierdzonych stanowisk tego grzyba w regionie.
W europejskiej rewizji taksonomicznej z 2008 roku potwierdzono występowanie B. edulis w mikoryzie ze świerkiem, dębem, brzozą, bukiem, lipą oraz rzadziej z sosną, na siedliskach o zróżnicowanej wilgotności – od wilgotnych po umiarkowanie suche. W badanej próbie 31 kolekcji uwzględniono materiały zielnikowe z Niderlandów, Szwecji, Finlandii, Belgii i Austrii, obok innych gatunków borowików oraz B. fechtneri jako grupy zewnętrznej.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Zdroje |
|---|---|---|---|
| Česko | Nie ustalono regionów w zapisanych danych | VI–X |
|
| Poľsko | Dolné Sliezsko — rozsah pomenovaný zdrojom | VI–XI |
|
Zdroje
- archive-boletus-edulis-profile
- Weryfikacja ochrony i handlu borowika szlachetnego w Polsce
- src-assyov-edulis
- src-beugelsdijk 2008
- src-cms-edulis
- Urzędowy status lub tekst aktu ELI
- Urzędowy status lub tekst aktu ELI
- src-korhonen-2009-edulis
- src-munoz-2019-edulis
- src-sf-edulis
- src-snowarski-edulis