
Jadalny

Wymaga obróbki

Na surowo trujący

Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.
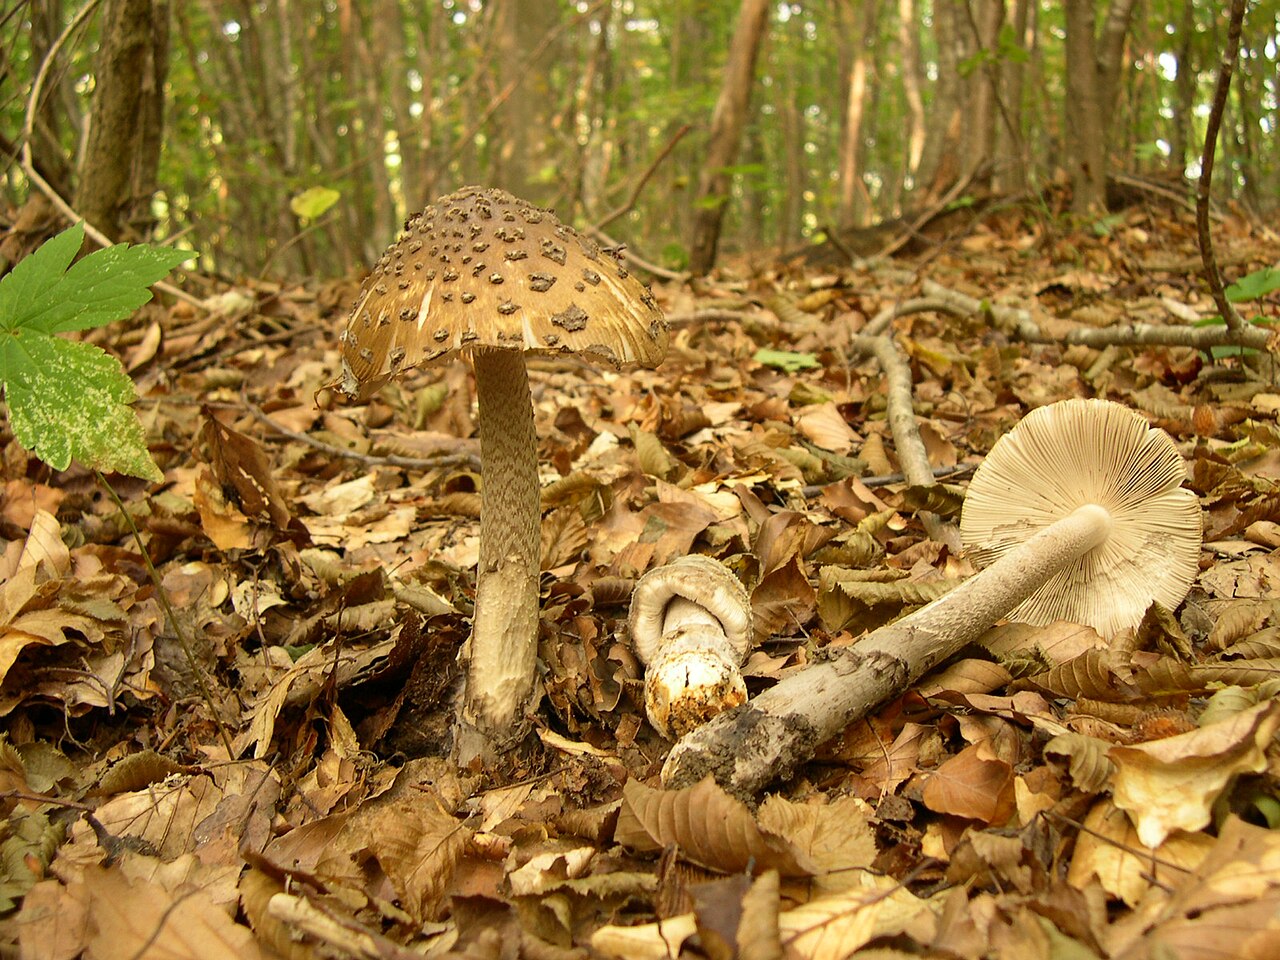
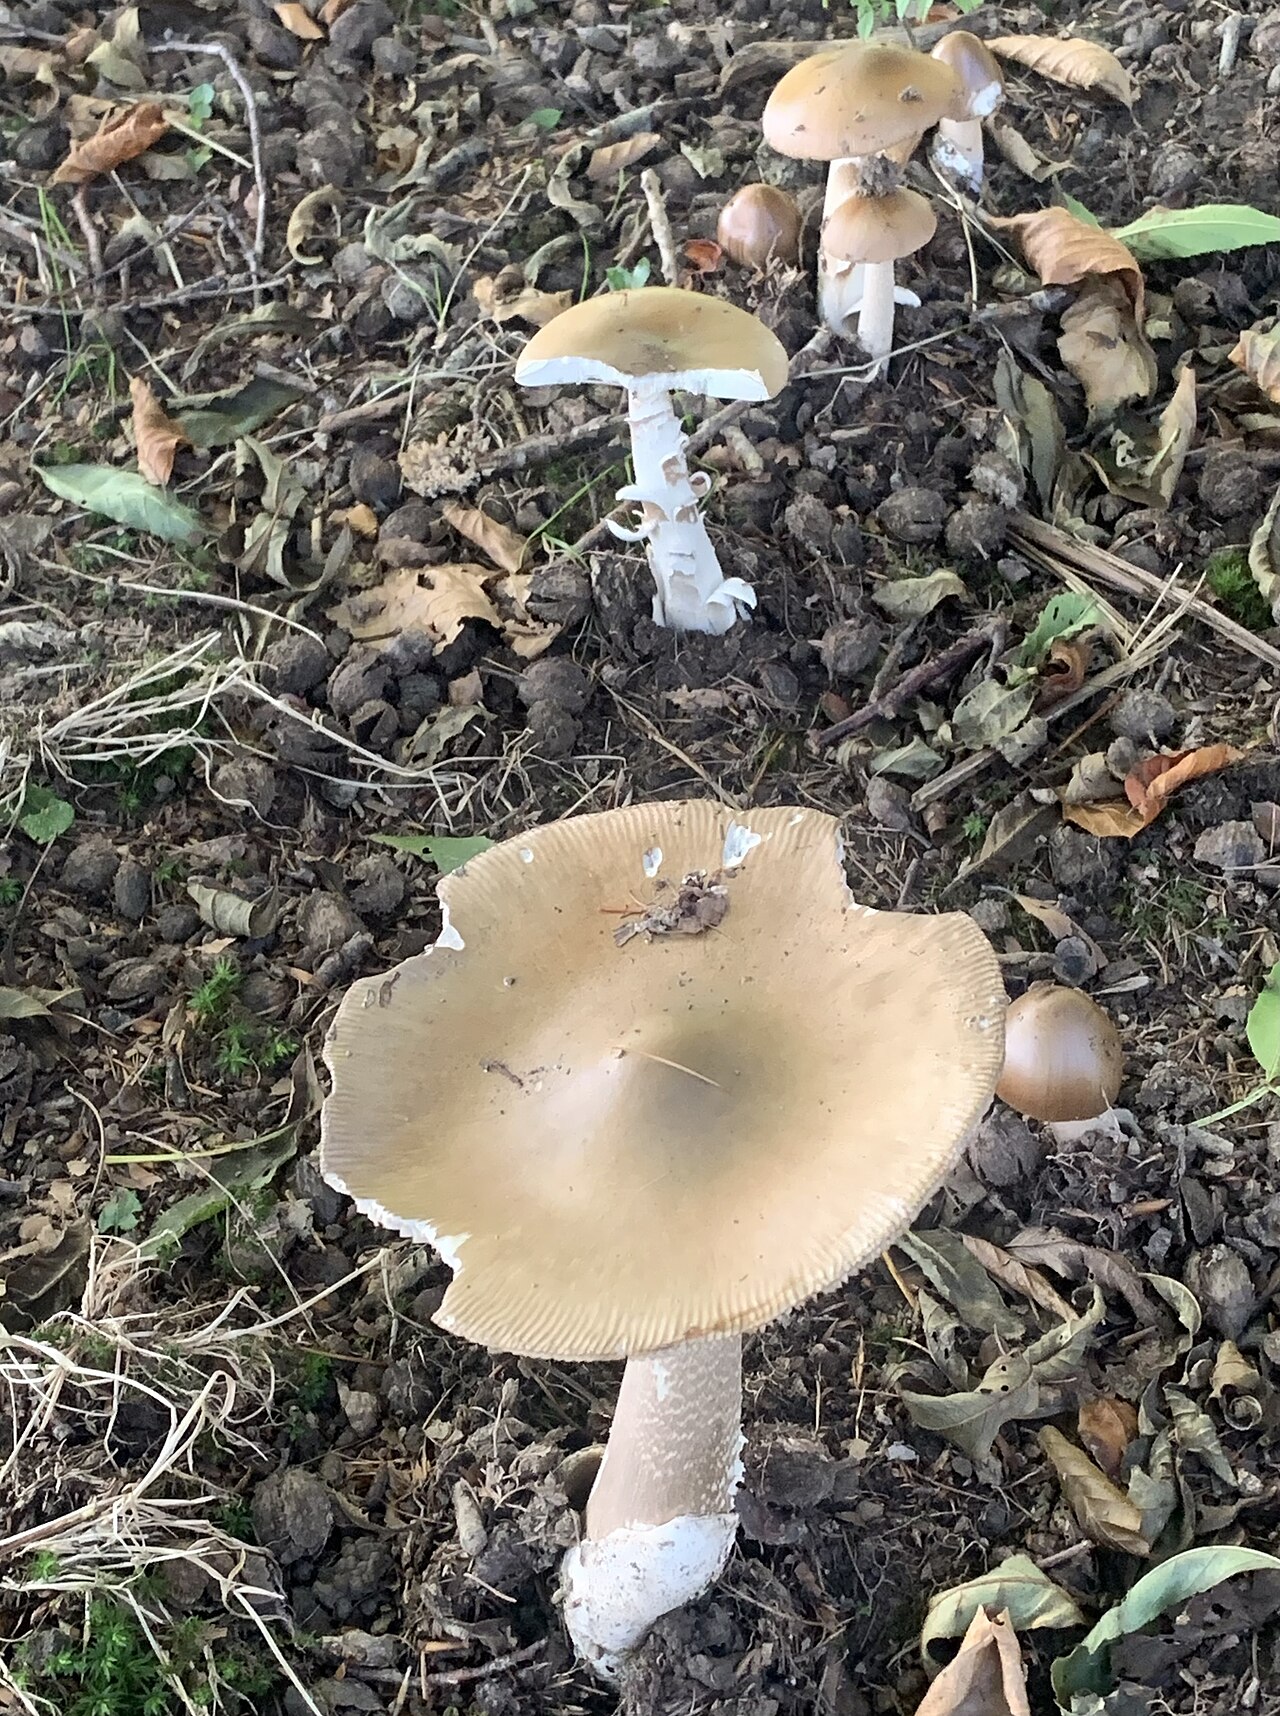
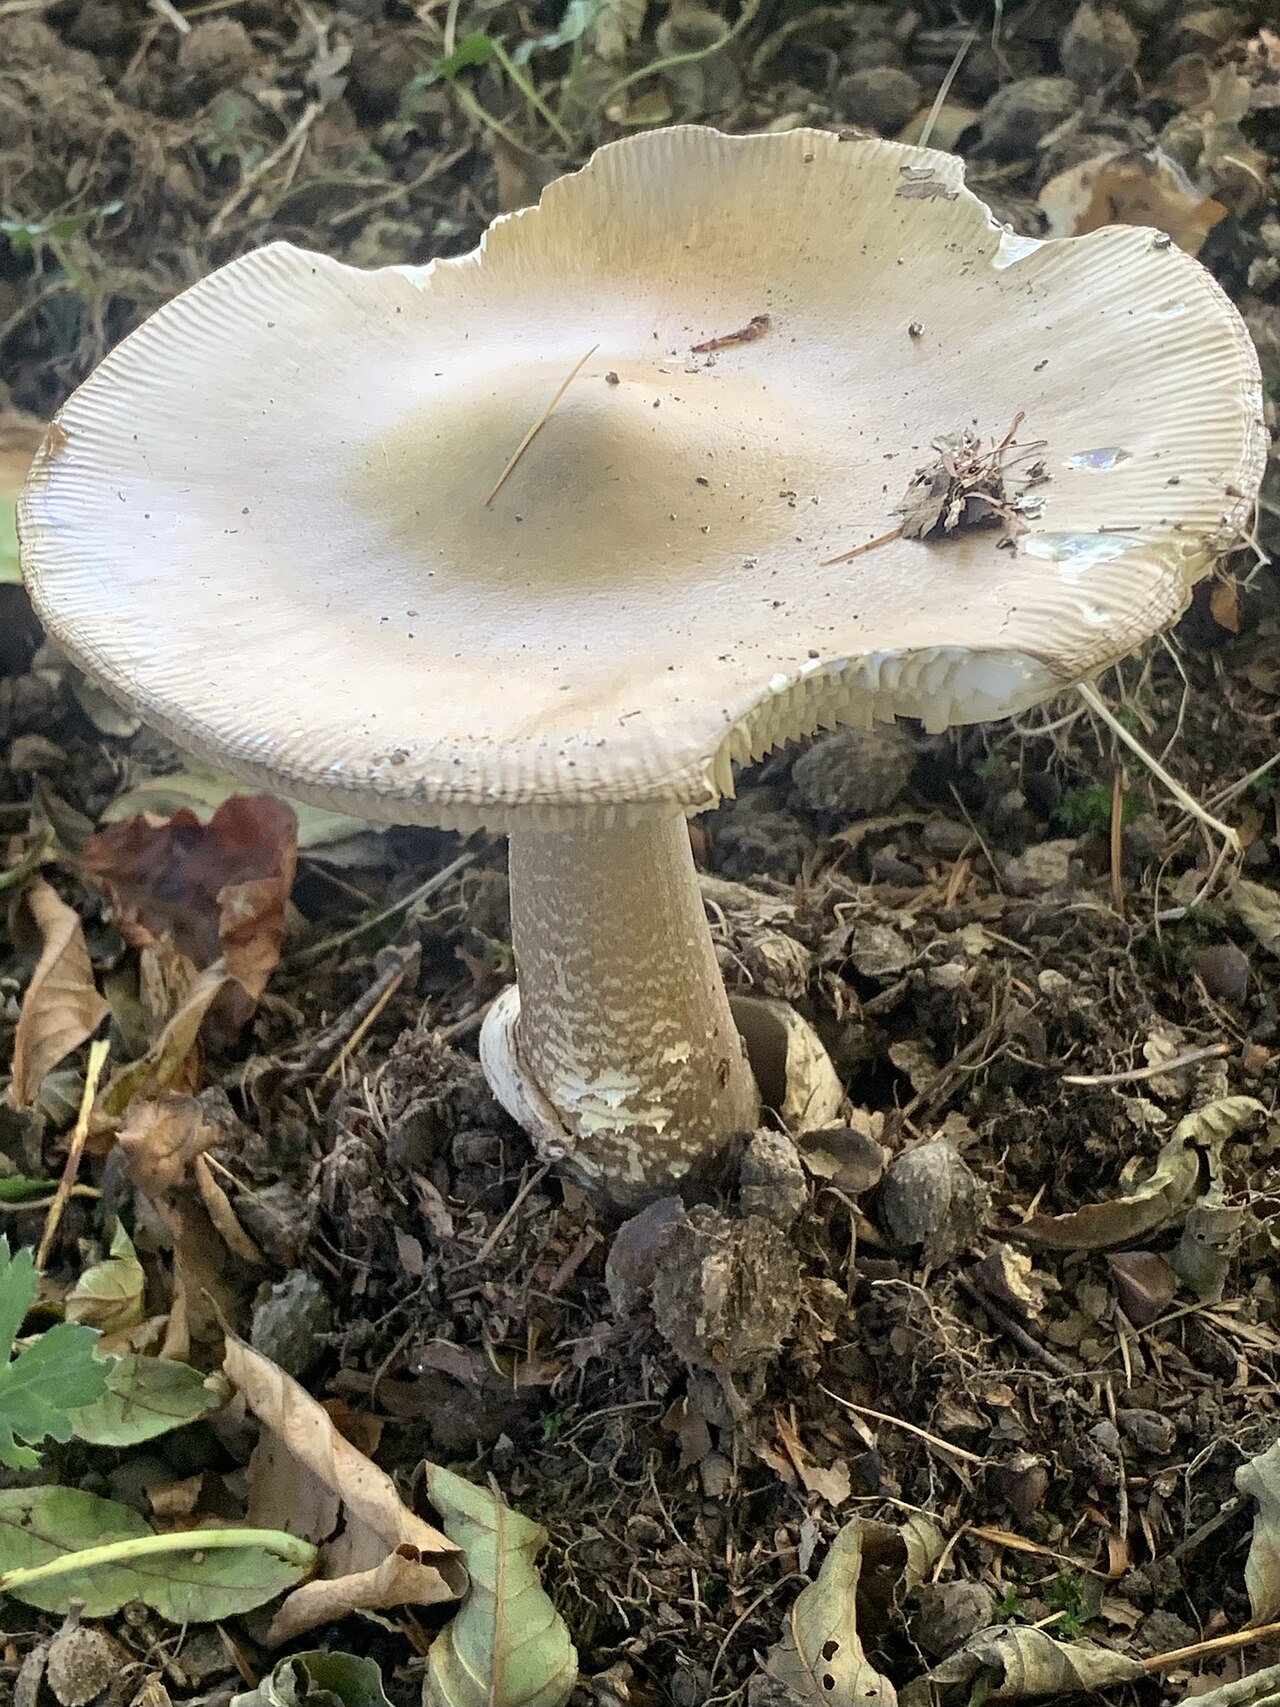
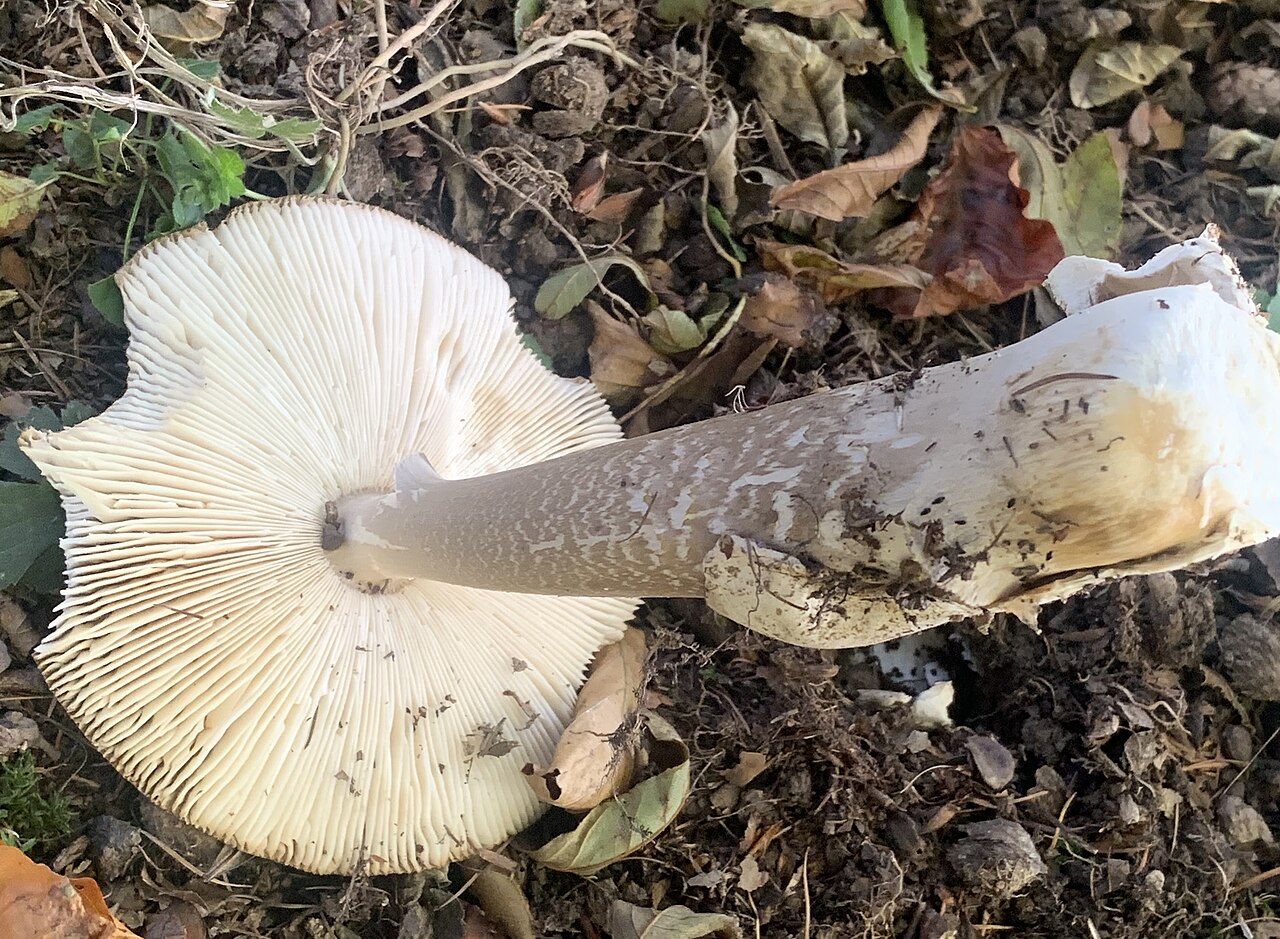
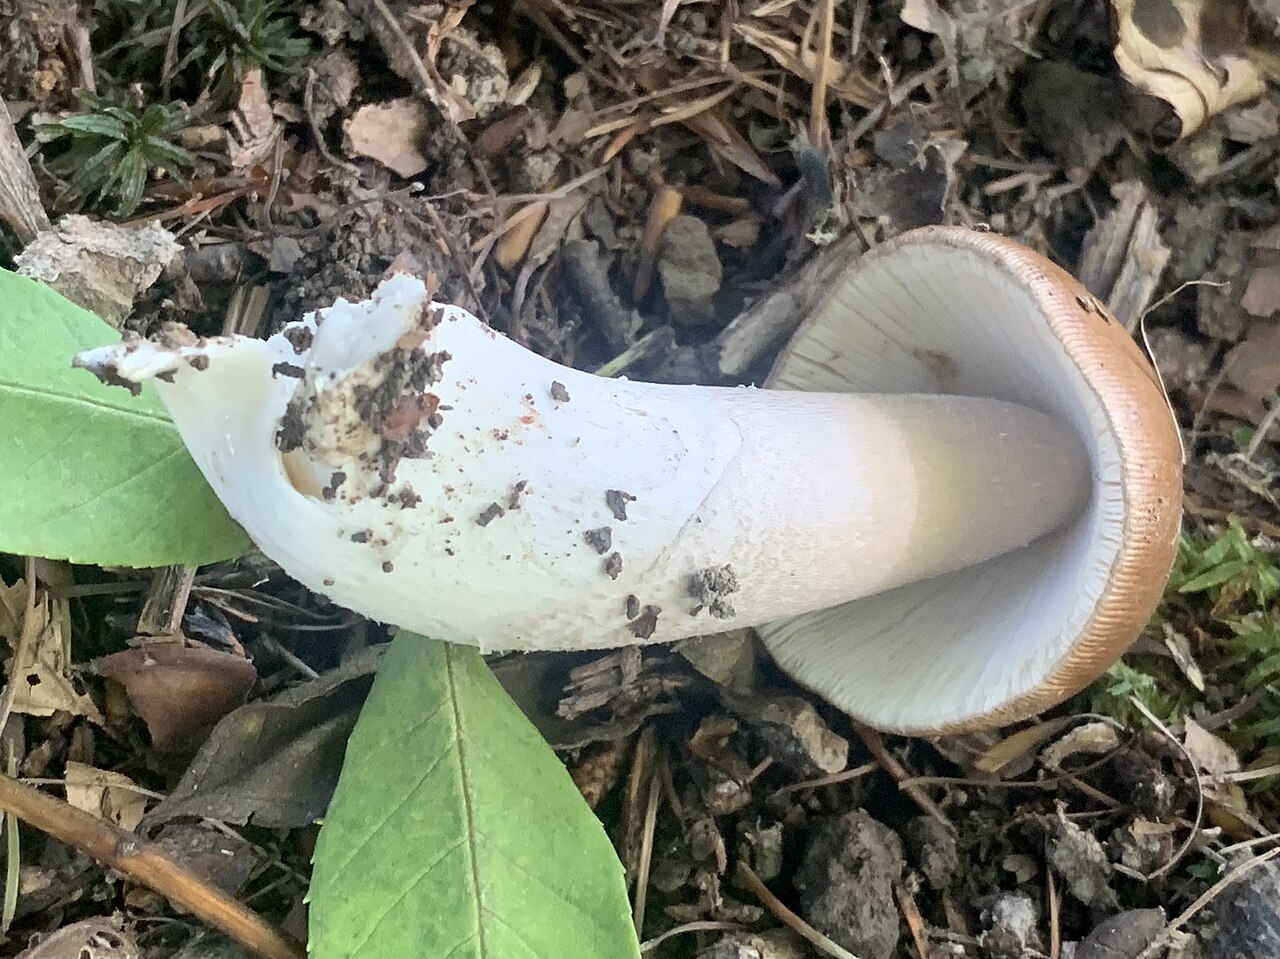
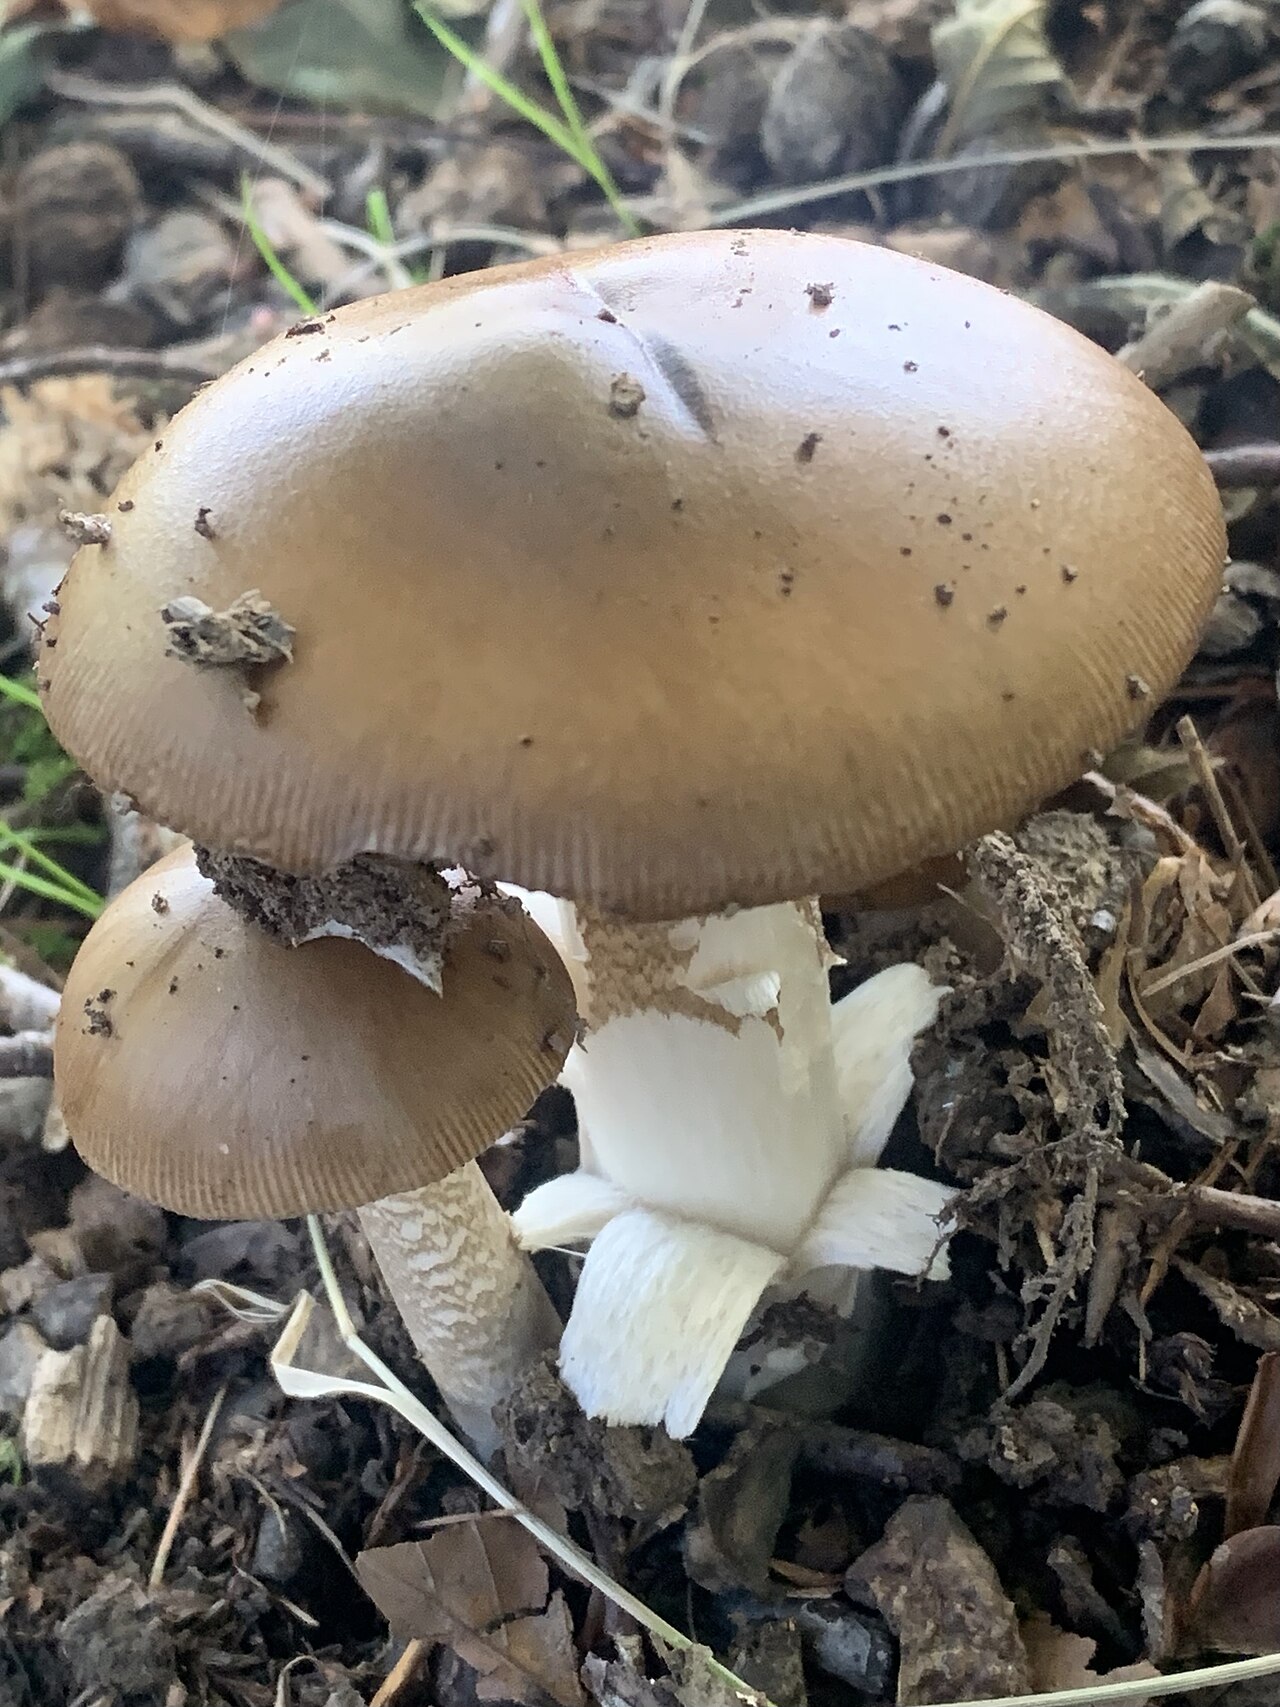
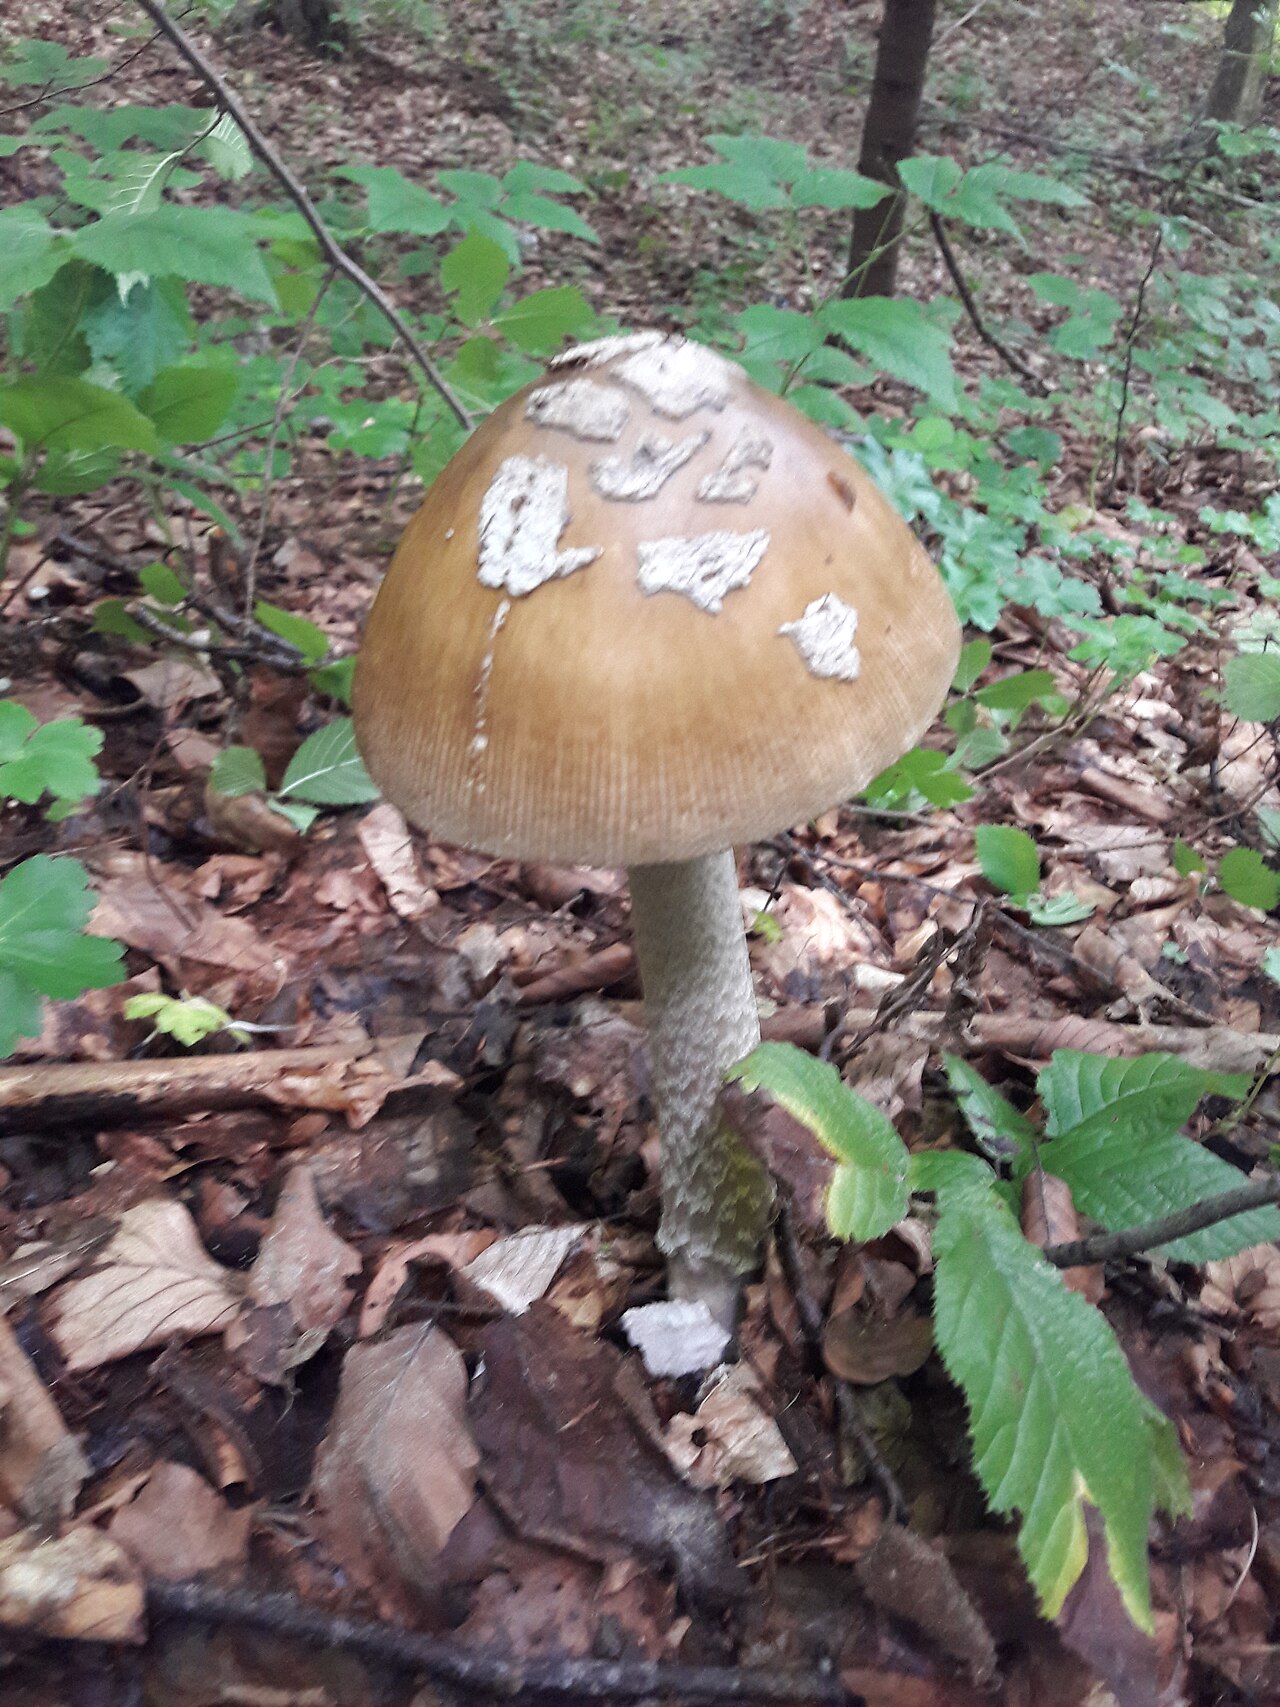
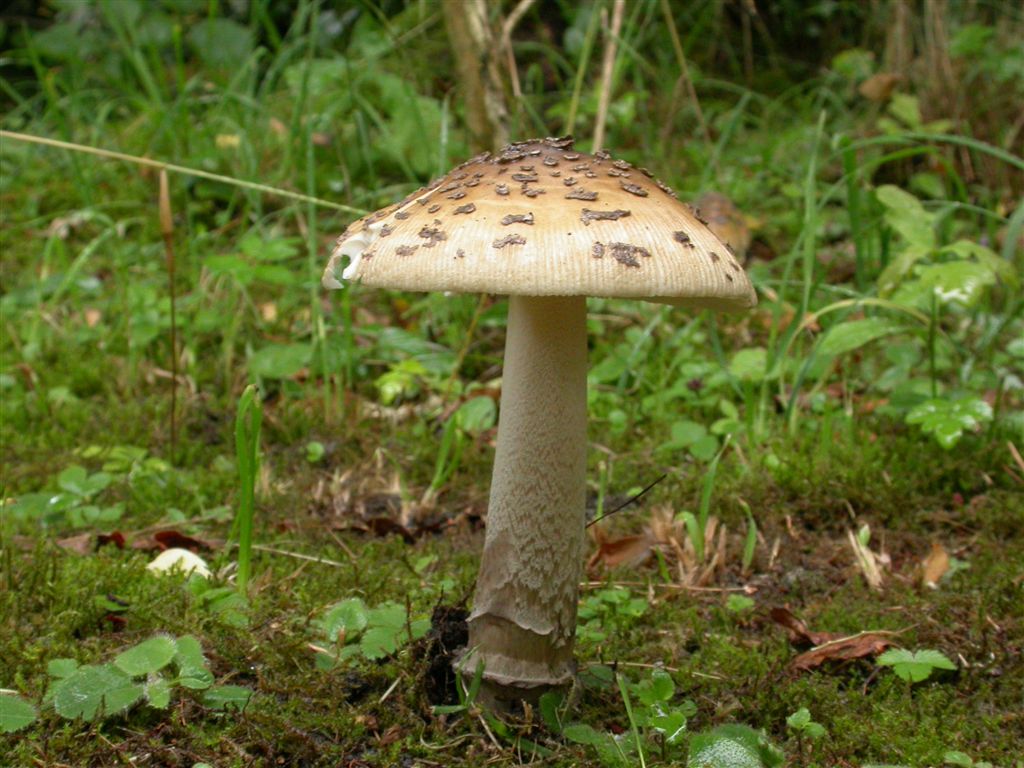
Amanita ceciliae, zwany muchomorem Cecylii lub wielkopochwowym, to okazały grzyb bezpierścieniowy o oliwkowobrązowym lub szarobrązowym kapeluszu pokrytym ciemnymi, kłaczkowatymi łatkami. Rośnie w lasach liściastych i mieszanych na glebach zasobnych w wapń. Jest gatunkiem jadalnym po ugotowaniu, lecz powszechnie omijanym z powodu rzadkości występowania, delikatności owocników oraz niebezpieczeństwa pomyłki z toksycznymi przedstawicielami rodzaju.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
Kapelusz
- Kształt
- Kapelusz może mieć kształt jajowaty, płaski lub wypukły; u młodych owocników — jajowaty; u dojrzałych owocników — półkulisty, dzwonkowaty, wypukły lub płaski.
- Połysk powierzchni
- W suchych warunkach powierzchnia kapelusza jest matowa.
- Lepkość i śluzowatość
- W wilgotnych warunkach powierzchnia kapelusza jest lepka.
- Kolor
- Kapelusz może być żółtobrązowy, czerwonobrązowy, szarobrązowy, oliwkowobrązowy, żółty, szarawy, oliwkowy, płowy lub kasztanowy.
- Ułożenie brzegu
- Brzeg kapelusza może być podwinięty, a u starych owocników może być odgięty ku górze.
- Ukształtowanie powierzchni brzegu
- Brzeg kapelusza jest bruzdkowany.
- Średnica
- Kapelusz może mieć średnicę od 50 do 200 milimetrów.
- Zasięg rowkowania brzegu kapelusza
- Rowkowanie brzegu kapelusza sięga jednej czwartej promienia kapelusza.
Spód kapelusza
- Typ
- Hymenofor ma budowę blaszkową.
Blaszki przy trzonie
- Połączenie z trzonem
- Blaszki mogą być przyrośnięte do trzonu lub wolne od trzonu.
- Szerokość przyrośnięcia hymenoforu
- Blaszki są wąsko przyrośnięte.
- Profil
- Blaszka jest równowąska.
- Barwa
- Hymenofor może być szary, białawy lub kremowobiały.
- Rozgałęzienie blaszek
- Blaszki są rozwidlone.
- Ostrze
- Ostrze blaszki jest karbowane i kłaczkowate.
- Naturalna barwa ostrza blaszki
- Ostrze blaszki jest czarniawe.
- Rozstaw
- Blaszki mogą być blisko rozstawione lub gęste.
- Grubość blaszek
- Blaszki są grube.
- Blaszeczki
- Stwierdzono obecność blaszeczek.
Trzon i podstawa
- Kształt
- Trzon jest walcowaty.
- Kolor
- Trzon może być biały lub szarobrązowy.
Góra trzonu może być biała.
Środek trzonu może być brązowawy.
Dół trzonu może być brązowawy. - Pokrycie powierzchni
- Powierzchnia trzonu może być kłaczkowata lub łuskowata. U góry może być oprószona lub jedwabista. U dołu może być łuskowata.
- Wzór powierzchni trzonu
- Powierzchnia trzonu jest zygzakowata.
- Barwa ornamentacji
- Ornamentacja trzonu jest biaława.
- Wnętrze
- Trzon może być pełny lub pusty.
- Konsystencja
- Trzon jest kruchy.
- Długość
- Trzon może mieć długość od 80 do 250 milimetrów.
- Grubość
- Trzon może mieć grubość od 10 do 40 milimetrów.
- Pochwa
- Stwierdzono obecność pochwy.
Pierścień
- Obecność
- Pierścień nie występuje u tego gatunku.
Bulwa
- Obecność
- U podstawy trzonu nie występuje bulwa.
Osłona u podstawy
- Budowa
- Osłona u podstawy trzonu może mieć postać pasów lub być workowata.
- Odporność pochwy i osłony u podstawy na uszkodzenie
- Osłona u podstawy trzonu jest łatwa do uszkodzenia.
- Odporność miąższu trzonu na przełamanie lub rozerwanie
- Miąższ trzonu może być łatwy do złamania.
- Barwa pochwy i osłony u podstawy trzonu
- Osłona u podstawy trzonu jest biała.
Miąższ
- Barwa
- Miąższ jest biały.
- Smak
- Smak miąższu może być słodki lub niewyróżniający się.
- Odporność na przełamanie lub rozerwanie
- Miąższ jest kruchy.
- Zapach
- Zapach jest niewyróżniający się; jest słaby.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach liściastych, w lasach iglastych, w lasach mieszanych lub w parkach.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba.
- Sposób wyrastania
- Owocniki mogą wyrastać pojedynczo, w rozproszonych grupach lub po kilka.
- Częstość
- Gatunek jest nieczęsty.
- Owocnikowanie
- Owocniki mogą pojawiać się od czerwca do października.
- Obszar występowania
- Potwierdzono występowanie w Polsce.
Jadalność i kuchnia
- Jadalność
- Jadalny
- Wymagana obróbka
- Wymaga obróbki
- Spożycie na surowo
- Na surowo trujący
Prawo
- Ochrona
- W Polsce nie podlega ochronie gatunkowej.
- Handel
- W Polsce nie jest dopuszczony do obrotu handlowego ani do produkcji przetworów grzybowych.
Z czym można pomylić
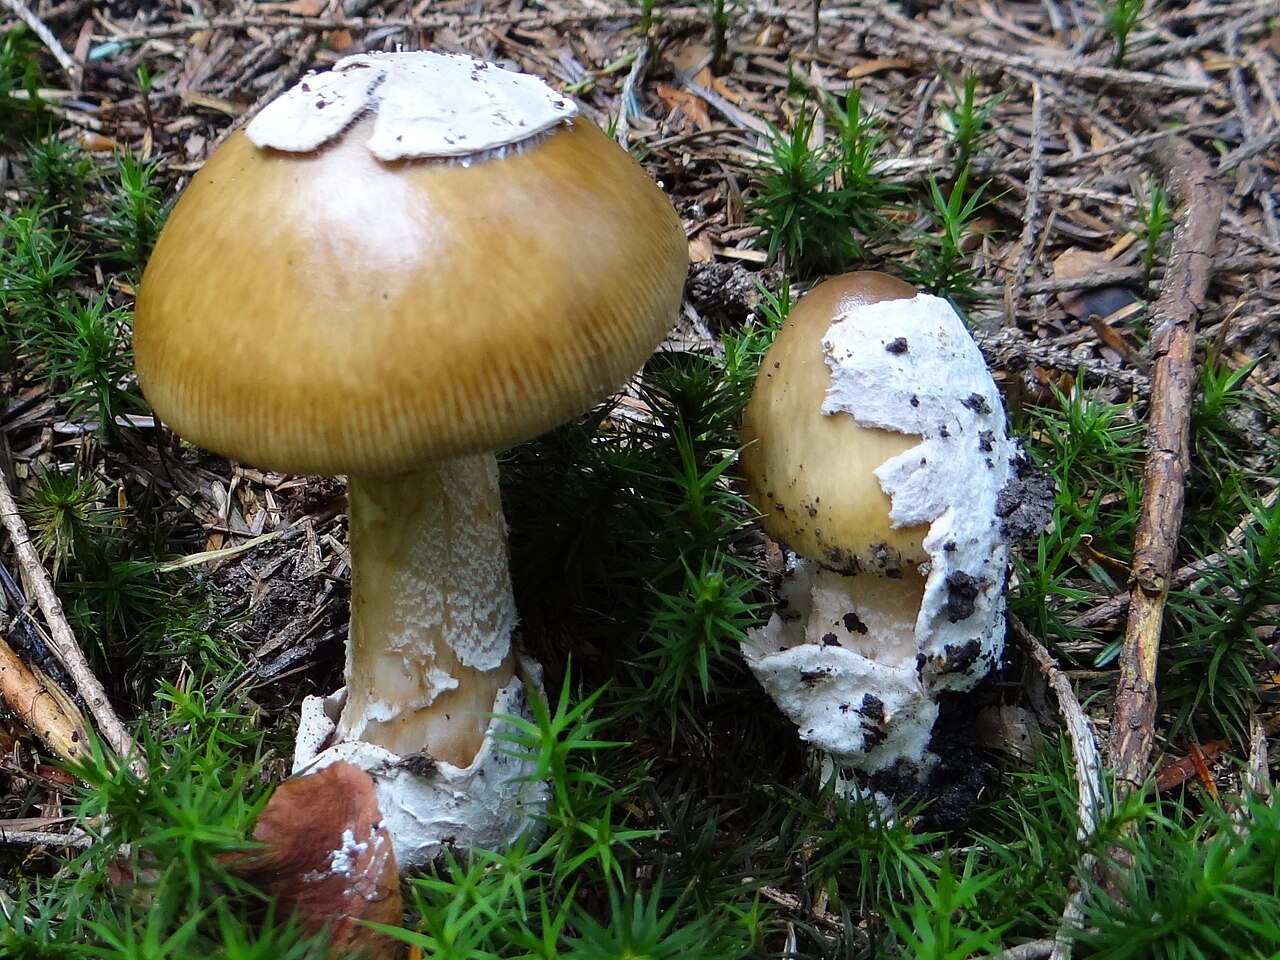
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Źródło zdjęcia · CC BY-SA 3.0Muchomor brązowooliwkowy
Amanita submembranacea
Najważniejsze różnice
Muchomor brązowooliwkowy (Amanita submembranacea) różni się obecnością dużych fragmentów osłony na kapeluszu oraz szarzejącą od wewnątrz pochwą, rosnąc głównie w lasach górskich na glebach kwaśnych.
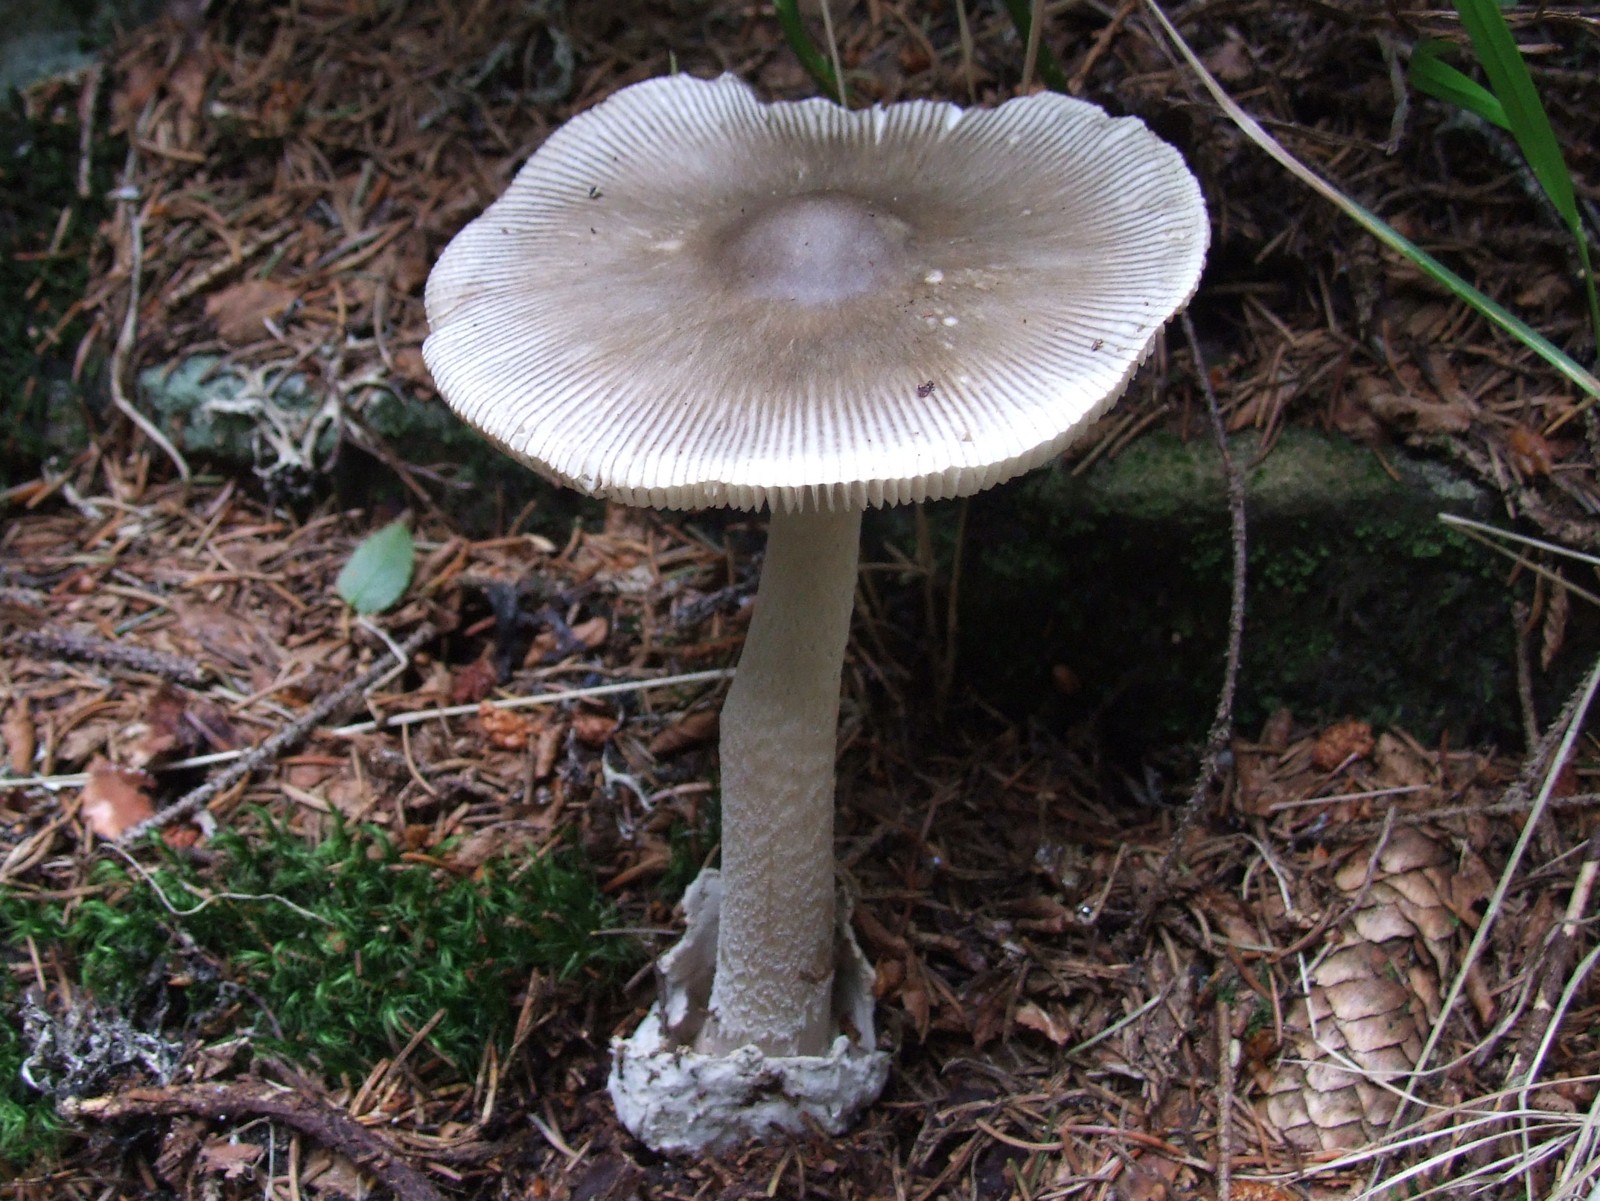
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Źródło zdjęcia · CC BY-SA 4.0Muchomor szarawy
Amanita vaginata
Najważniejsze różnice
Muchomor szary (Amanita vaginata) odznacza się gładkim, białym trzonem pozbawionym ciemnych łusek i zygzakowatego wzoru.
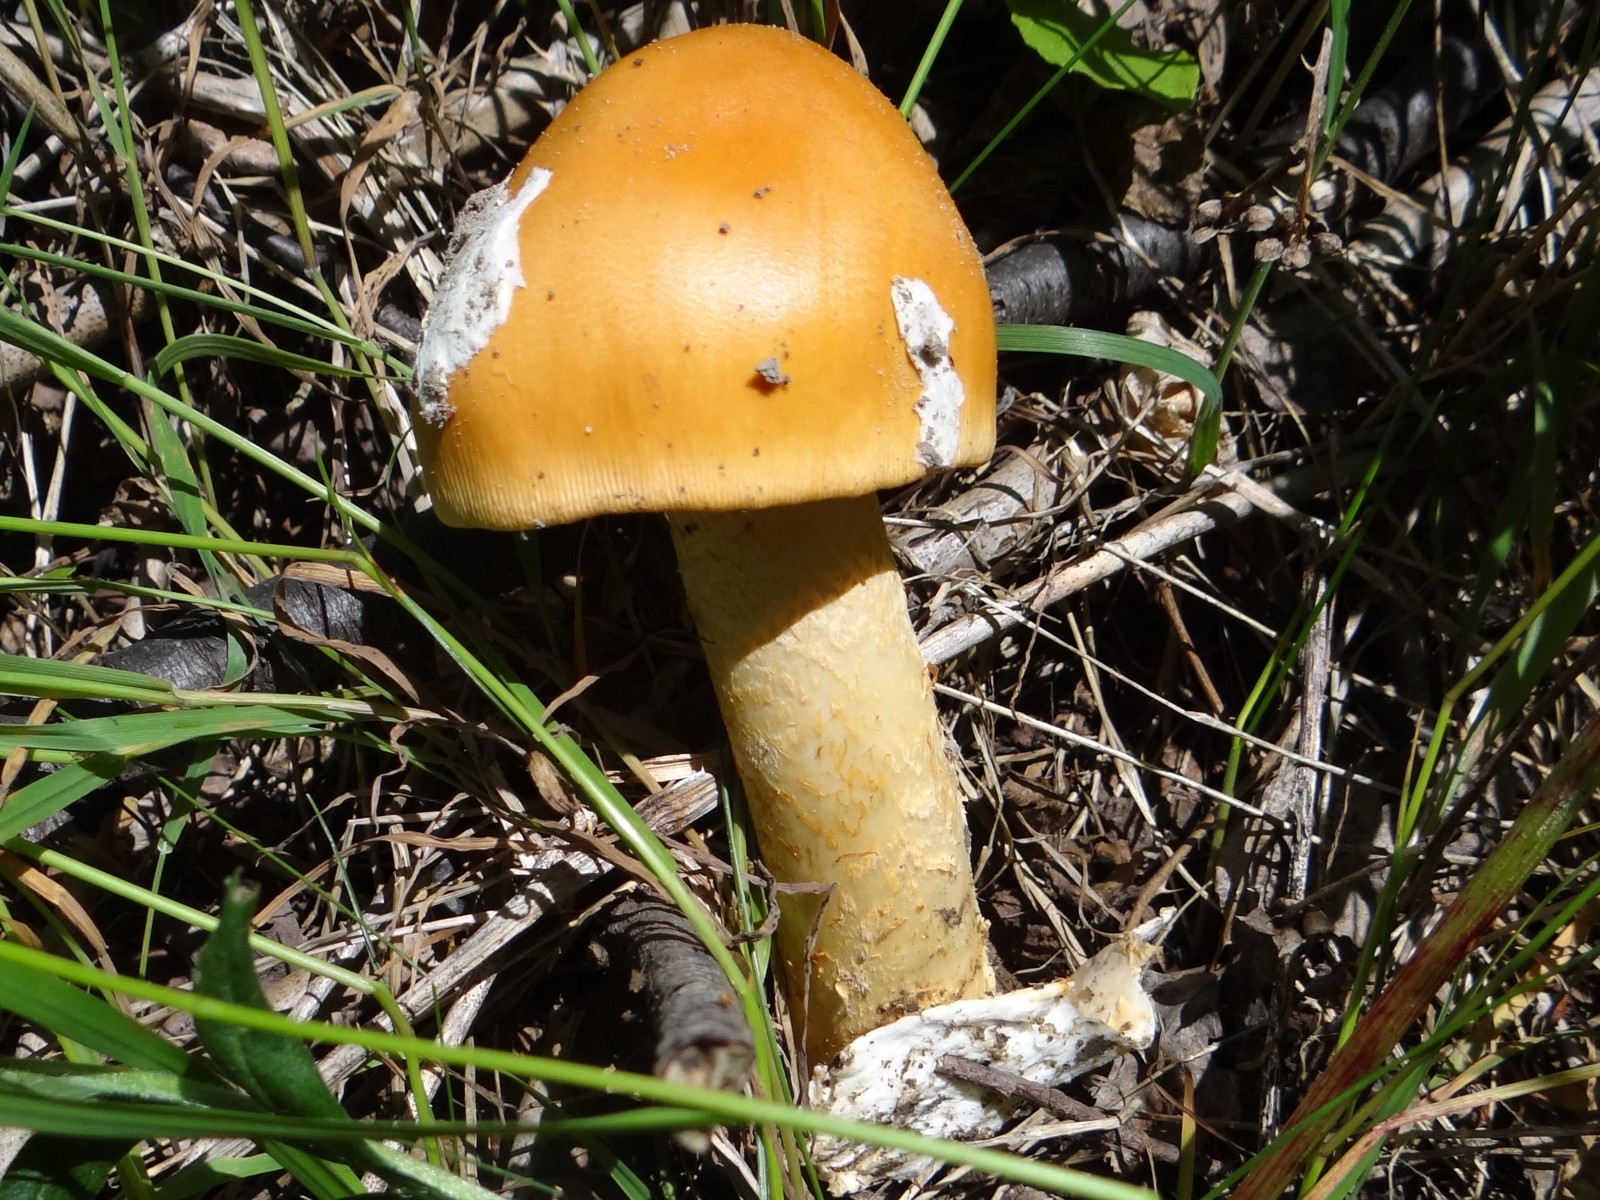
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Źródło zdjęcia · CC BY-SA 4.0Muchomor żółtawy
Amanita crocea
Najważniejsze różnice
Muchomor żółtawy (Amanita crocea) ma kapelusz jaskrawo szafranowy do pomarańczowożółtego i pochwę zabarwioną wewnątrz na pomarańczowo.
Amanita pantherina
Najważniejsze różnice
Gatunek może być mylony z silnie trującym muchomorem plamistym (Amanita pantherina). Muchomor plamisty posiada wyraźny pierścień na trzonie oraz bulwę z wałeczkami u podstawy, jednak w deszczu lub u starszych okazów pierścień może ulec zatarciu i odpaść.
Amanita friabilis
Najważniejsze różnice
Amanita friabilis jest znacznie mniejszy (kapelusz do 6 cm), ma drobniejsze zarodniki i występuje wyłącznie pod olszami.
Amanita fulva
Najważniejsze różnice
Muchomor rdzawobrązowy (Amanita fulva) ma kapelusz w odcieniach lisiorudych i płowopomarańczowych oraz gładki trzon i rdzawiejącą pochwę.
FAQ
Czy Amanita ceciliae jest trujący?
Na surowo jest trujący, lecz po dokładnym ugotowaniu staje się jadalny.
Na czyją cześć nazwano ten gatunek?
Został nazwany na cześć Cecilii Berkeley, żony brytyjskiego mykologa.
W jakich lasach występuje najczęściej?
Rośnie głównie w ciepłych lasach liściastych, pod dębami, bukami i grabami.
Jakie podłoże preferuje ten muchomor?
Preferuje gleby żyzne, gliniaste, próchniczne i zasobne w wapń.
Kiedy przypada szczyt owocnikowania?
Szczyt owocnikowania przypada na późne lato i wczesną jesień (sierpień-wrzesień).
Czy ten gatunek posiada pierścień?
Nie, Amanita ceciliae nie posiada pierścienia na trzonie.
Dlaczego odradza się jego zbieranie?
Z powodu ryzyka pomylenia ze śmiertelnie trującymi muchomorami oraz rzadkości.
Jakie inne nazwy łacińskie nosił ten grzyb?
W dawniejszej literaturze był często opisywany jako Amanita inaurata.
Czy jest to gatunek pospolity w Polsce?
Nie, w Polsce należy do gatunków rzadkich i zasługujących na ochronę.
Jaką funkcję pełni współcześnie w ekologii?
Jest wskaźnikiem starych, dobrze zachowanych biologicznie lasów liściastych.
Miłośnik
Nazwy i historia
- Obowiązująca nazwa krajowa
- Muchomor złotawy
- Obowiązująca nazwa taksonomiczna
- Amanita ceciliae (Berk. & Broome) Bas
- Pozostałe nazwy
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników ma barwę białą.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik może mieć kształt kulisty lub niemal kulisty.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 9,5 do 25 mikrometrów i szerokość od 8,6 do 25 mikrometrów.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Ekologia i rozmieszczenie
- Wapienność gleby
- Występuje na glebie wapiennej.
- Drzewa liściaste w otoczeniu
- W otoczeniu rosną buki, graby i dęby.
- Drzewa iglaste w otoczeniu
- W otoczeniu rosną jodły.
- Sposób odżywiania
- Gatunek ma sposób odżywiania mikoryzowy.
Zastosowania pozakulinarne
Podobnie jak w przypadku większości muchomorów bezpierścieniowych, Amanita ceciliae posiada bardzo nieliczne udokumentowane zastosowania pozakulinarne. W przeszłości, w niektórych regionach Europy Zachodniej, ciemne kłaczki i skórka kapelusza były okazjonalnie wykorzystywane w domowym barwieniu włókien naturalnych. Odwary z kapeluszy pozwalały uzyskać na przędzy wełnianej i jedwabnej subtelne odcienie szarości, brązu i oliwki, utrwalane przy pomocy popiołu drzewnego lub ałunu.
W tradycyjnych wierzeniach wiejskich na Wyspach Brytyjskich owocniki Amanita ceciliae bywały czasami kładzione w pobliżu zabudowań gospodarskich lub przy wejściach do spiżarni jako element magii ochronnej, mający odstraszać gryzonie i złe moce w okresie jesiennym.
W czasach współczesnych gatunek ten stanowi cenny obiekt badań taksonomicznych i biogeograficznych. Jako grzyb rzadki i wrażliwy na zanieczyszczenia przemysłowe jest wykorzystywany w bioindykacji jakości ekosystemów leśnych, służąc leśnikom i ekologom za wskaźnik ciągłości biologicznej starych drzewostanów liściastych.
Historia i kultura
Muchomor złotawy zajmuje szczególne miejsce w XIX-wiecznej historii mykologii za sprawą okoliczności jego naukowej dedykacji. Gatunek został formalnie opisany w 1854 roku przez wybitnego angielskiego badacza Milesa Josepha Berkeleya oraz Christophera Edmunda Broome’a. Berkeley nadał mu epitet gatunkowy na cześć swojej ukochanej żony, Cecilii Berkeley, doceniając jej wieloletnią pomoc w badaniach terenowych i tworzeniu botanicznych ilustracji. W polskim piśmiennictwie przyrodniczym XIX i początków XX wieku funkcjonował w rezultacie pod tradycyjną nazwą bedłki Cecylii lub muchomora Cecylii, co stanowi rzadki przykład utrwalenia w nomenklaturze mykologicznej osobistego hołdu.
W brytyjskim i amerykańskim folklorze przyrodniczym gatunek zyskał powszechnie używaną, obrazową nazwę „snakeskin grisette”, czyli „wężowa panienka”. Przydomek ten wywodzi się ze skojarzeń charakterystycznego rysunku popękanego welum na kapeluszu z łuskami węża, co w lokalnych opowieściach i literaturze leśnej przydawało grzybowi aury tajemniczości. W tradycji ludowej wielu regionów Europy bezpierścieniowe muchomory postrzegane były jako leśne osobliwości, a ich obecność wiązano z dawnymi wierzeniami o duchach opiekuńczych starych drzewostanów.
Jadalność i bezpieczeństwo
Muchomor złotawy jest grzybem warunkowo jadalnym, który bezwzględnie wymaga dokładnej, długiej obróbki termicznej. Spożyty na surowo lub niedogotowany wywołuje ostre zatrucia żołądkowo-jelitowe o nieprzyjemnym przebiegu. Aby zneutralizować zawarte w nim termolabilne substancje drażniące przewód pokarmowy, owocniki muszą zostać starannie obgotowane, a woda z gotowania bezwzględnie wylana przed dalszym przyrządzeniem.
Ugotowane kapelusze cechują się delikatnym, łagodnym, lekko orzechowym smakiem oraz miękką konsystencją, przez co bywają cenione przez koneserów. Mimo walorów smakowych w Polsce oraz w większości krajów Europy Środkowej tradycja kulinarna traktuje ten gatunek z ogromną rezerwą i odradza jego pozyskiwanie z uwagi na wysokie ryzyko pomyłki ze śmiertelnie trującymi przedstawicielami tego samego rodzaju. Z kolei w niektórych regionach basenu Morza Śródziemnego, a także w wybranych częściach Azji, grzyb ten bywa lokalnie zbierany i traktowany jako pożądany przysmak sezonowy po odpowiednim sparzeniu. Głównym warunkiem bezpiecznej konsumpcji pozostaje absolutna pewność oznaczenia oraz rygorystyczne przestrzeganie pełnej obróbki cieplnej.
Siedlisko i występowanie
Muchomor złotawy jest gatunkiem rodzimym dla Europy, notowanym również w umiarkowanych rejonach Azji, natomiast dawne wzmianki o jego występowaniu w Ameryce Północnej współczesna taksonomia wiąże z odrębnymi gatunkami. W Europie Środkowej, w tym w Polsce, jest gatunkiem stosunkowo rzadkim i spotykanym na rozproszonych stanowiskach. Tworzy związki mikoryzowe głównie z drzewami liściastymi, takimi jak dęby, buki, graby, lipy czy brzozy, choć w wyższych położeniach i w rejonach górskich bywa notowany także pod drzewami iglastymi, przede wszystkim pod świerkami i jodłami.
Preferuje gleby żyzne, próchniczne, gliniaste oraz wapienne, często o odczynie obojętnym lub zasadowym. Zasiedla lasy liściaste i mieszane, zwłaszcza ciepłolubne dąbrowy, świetliste buczyny i grądy, a niekiedy także zadrzewione parki o starym drzewostanie. Owocniki pojawiają się zazwyczaj pojedynczo lub w niewielkich grupach od wczesnego lata do późnej jesieni. W warunkach klimatycznych Polski udokumentowany sezon przypada na okres od czerwca do października, przy czym szczyt pojawu odnotowuje się w sierpniu i wrześniu. W cieplejszych strefach południa Europy sezon ten bywa przesunięty i może trwać nawet do listopada.
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jadalność
- Jadalny — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, ocena autora, bez badania bezpieczeństwa klinicznego
- Spożycie na surowo
- Trujący
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
- Jadalność
- Trujący
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
- Wymagana obróbka
- Wymaga obróbki
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Amanita ceciliae (Berk. & Broome) Bas
Zakres taksonu i ograniczenia oznaczania
Badania taksonomiczne wykazały, że część północnoamerykańskich grzybów opisywanych dawniej jako A. ceciliae lub A. inaurata należy do odrębnych gatunków, takich jak Amanita rhacopus i Amanita variicolor. Współczesne ujęcie A. ceciliae odnosi się do populacji europejskich.
[11] [13]W badaniach filogenetycznych sekcji Vaginatae potwierdzono pozycję europejskiego taksonu A. ceciliae (reprezentowanego m.in. przez zbiory z Węgier) przy użyciu analizy sekwencji czterech loci: ITS, LSU, RPB1 i TEF1-α.
[13]- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[12] [9] [13] [3]
Ekologia i rozmieszczenie
Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
- Długość sterygmy podstawki
- Długość sterygmy podstawki może wynosić do 8,4 mikrometra. [32]
- Liczba zarodników na jednej podstawce
- Liczba zarodników na jednej podstawce wynosi od 2 do 4. [34] [32]
- Kształt podstawki
- Podstawka jest maczugowata. [34]
- Szerokość sterygmy
- Szerokość sterygmy może wynosić do 3,1 mikrometra. [32]
- Sprzążki
- Nie zaobserwowano sprzążek w badanych tkankach owocnika. [34]
Pozostałe cechy laboratoryjne
- Płodność ostrza blaszek
- Ostrze blaszki jest sterylne. [34]
- Pomiar strefy podhymenialnej
- Pomiar strefy podhymenialnej (wst-near) może wynosić od 15 do 35 mikrometrów. [32]
Pomiar strefy podhymenialnej (wst-far) może wynosić od 50 do 70 mikrometrów. [32] - Układ komórek osłony całkowitej
- Na kapeluszu komórki osłony znajdują się na końcach strzępek. [32]
Skórka kapelusza
- Wygląd optyczny strzępek skórki
- W górnej warstwie skórki strzępki są hialinowe. [34]
- Układ strzępek skórki
- Strzępki skórki kapelusza są ułożone w sposób zbliżony do promienistego. [32]
- Kształt elementów skórki kapelusza
- Elementy skórki kapelusza mają kształt walcowaty. [34]
- Szerokość elementów skórki
- Szerokość elementów skórki może wynosić od 1,1 do 7,7 mikrometra [32], w warstwie powierzchniowej może wynosić od 0,8 do 3 mikrometrów [34], a w warstwie niższej może wynosić od 2,5 do 4 mikrometrów. [34]
- Rozgałęzienie strzępki skórki
- Strzępka skórki jest rozgałęziona. [32]
- Osadzenie strzępek skórki w substancji żelowej
- Strzępki skórki kapelusza mogą być osadzone w substancji żelowej. [34]
Strzępki skórki kapelusza mogą być zżelatynizowane wyłącznie przy powierzchni. [32]
W dolnej warstwie skórki nie stwierdzono zżelatynizowania strzępek skórki kapelusza. [32]
U dojrzałego owocnika strzępki skórki kapelusza mogą być zżelatynizowane wyłącznie przy powierzchni. [32] - Barwa pigmentu skórki
- Pigment skórki kapelusza jest brązowy. [32]
- Organizacja skórki kapelusza
- Skórka kapelusza ma organizację typu kutis. [34]
Reakcje z odczynnikami
- Reakcja amyloidalna
- Reakcja amyloidalna zarodników w odczynniku Melzera jest ujemna. [34]
Zarodniki
- Średni iloraz długości i szerokości zarodnika
- Średni iloraz długości i szerokości zarodnika wynosi 1,04. [34]
- Profil adaksjalnej strony bazydiospory
- Adaksjalna strona bazydiospory jest spłaszczona. [32]
- Obecność wyrostka wnęki bazydiospory
- Stwierdzono obecność wyrostka wnęki bazydiospory. [32]
- Położenie wyrostka wnęki bazydiospory
- Wyrostek wnęki bazydiospory ma położenie podboczne. [32]
- Kształt wyrostka wnęki bazydiospory
- Wyrostek wnęki bazydiospory ma kształt cylindryczny. [32]
- Barwa zarodnika w mikroskopie
- Zarodnik w obrazie mikroskopowym jest hialinowy, bezbarwny i przejrzysty. [34] [32]
- Obecność ciał lipidowych
- Stwierdzono obecność ciał lipidowych. [34]
- Iloraz długości i szerokości zarodnika
- Iloraz długości i szerokości zarodnika może wynosić od 0,94 do 1,36. [34] [32]
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką. [9] [32]
- Objętość zarodnika
- Objętość zarodnika może wynosić od 410 do 2030 mikrometrów sześciennych. [34]
- Grubość ściany zarodnika
- Zarodnik jest cienkościenny. [32]
Trama hymenoforu
- Typ tramy hymenoforu
- Trama hymenoforu jest bilateralna — dwustronna. [32]
- Szerokość strzępek tramy
- Szerokość strzępek tramy może wynosić od 2,8 do 5,9 mikrometra. [32]
- Długość rozdętej komórki tramy hymenoforu
- Rozdęta komórka tramy hymenoforu może mieć długość do 74 mikrometrów. [32]
- Szerokość rozdętej komórki tramy hymenoforu
- Rozdęta komórka tramy hymenoforu może mieć szerokość do 16,7 mikrometra. [32]
Materiał i metody badań
Opis cech — źródło i zakres
Materiał: Atlasowy opis miąższu K.Tejkala/ČMS; zapach nevýrazný.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Opis autora bez numeru zbadanej próbki; nie utożsamiono niewyraźnego zapachu z chemiczną nieobecnością substancji zapachowych.
[20]Dane mikroskopowe — źródło i ograniczenia
Materiał: ŚrednieQ zarodników zbioru 4813,100 pomiarów autora M.Zugny; ten sam materiał co osobne badanie mikroskopowe, nie nowe doświadczenie.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Średnia podana wprost przez autora; nie dzielono niezależnych granic długości i szerokości.
[34]Badanie składu i aktywności — Akata i in (2012)
Materiał: Owocniki z Anatolii, oznaczone jako Amanita ceciliae, AKATA 3037,850 m; metanolowy ekstrakt suszonego materiału. Próba DPPH, 517 nm, 30 min w ciemności; trzy powtórzenia.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Wynik in vitro, nie potwierdzone leczenie lub bezpieczna dawka żywności. Brak w tej pracy weryfikacji molekularnej oznaczenia; nie polski materiał. Streszczenie ma sprzeczne przypisanie 96,16% przy 4,51 mg/ml; bezpośrednio odczytany wiersz daje 95,35 ± 0,10% przy 4,65 mg/ml.
[18] [15] [16]Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[9]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[10]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[5]- Wyniki źródłowe — Liczba zarodników na jednej podstawce
- Liczba zarodników na jednej podstawce wynosi 2. [34] [32]
Liczba zarodników na jednej podstawce wynosi 4. [34] [32] - Wyniki źródłowe — Szerokość strzępki osłony całkowitej
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [32]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [34]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [32]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [32]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [32]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [32]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [32]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [32]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [32]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [32]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [32]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [32]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [32]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [32]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [32]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [32]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [32]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [32]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [32]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [32]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [32]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [32]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [34]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [34]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [34]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [34]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [34]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [34]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [34]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [34]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [32]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [32]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [32]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [32]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [32]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [32]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [32]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [32]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [32]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [32]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [32]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [32]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [9]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [9]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [9]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Nazwy i granice gatunku
Nazwa polska: Muchomor złotawy jest nazwą używaną w polskim wykazie Wojewody 2003. Autor odsyła do Borowskiej i Skirgiełło w Garnweidnerze 1993; wcześniejszego wydania nie odczytano. Wykaz zachowuje też historyczną nazwę Domańskiego 1955 a. Sześć nazw z atlasu Ekologia.pl zapisano jako alternatywne z pochodzeniem atlasowym. Nie ustanawia to ich nazwami urzędowymi ani nie potwierdza dawnych nierozstrzygniętych etykiet rekordu.
Publikacje pierwotne: Berkeley i Broome opisali Agaricus ceciliae w 1854 r., pozycja 663, s. 396–397. Bas w 1984 r., s. 192, po sprawdzeniu materiału typowego w Kew utworzył kombinację Amanita ceciliae. Rok 1984 odczytano w samej publikacji; wcześniejsza rozbieżność 1983/1984 pozostaje w historii. Bas oddzielił błędne późniejsze użycia nazwy strangulatus od pierwotnego opisu Fries 1838, dotyczącego innego, nierozstrzygniętego gatunku. Nie dodano prawdziwego Agaricus strangulatus jako prostego synonimu.
Zakres taksonu i materiał poza Europą: Opracowanie dotyczy europejskiego ujęcia Amanita ceciliae, w tym odrębnie udokumentowanego węgierskiego okazu DB-2018-07-08-5/AD22. Nie oznacza ponownego oznaczenia wszystkich okazów atlasowych ani utożsamienia materiału meksykańskiego, gwatemalskiego aff. ceciliae lub A. sororcula z materiałem europejskim. Lambert i współautorzy wydzielili z dawnych północnoamerykańskich oznaczeń A. rhacopus i A. variicolor na podstawie morfologii, typów i ITS. Ograniczenie dotyczy również przenoszenia zdjęć, zgłoszeń zatruć i doniesień o spożyciu.
[33] [21] [29] [19] [25] [13]Polskie występowanie i owocnikowanie
Występowanie i miesiące: Wojewoda podaje polskie stanowiska m.in. z okolic Elbląga, Wielkopolskiego PN, Kampinosu, Głogowa, Dębowca, Annopola, Babiej Góry, Pienin i Polesia oraz termin czerwiec–październik. To przegląd literatury, a nie nowy monitoring całej Polski. GRej zawiera dalsze, jawnie oznaczone polskie obserwacje. Miesiące wpisano z polskiego wykazu; pojedynczych dat zbiorów nie przeliczono na granice sezonu.
Siedlisko i ostrożność interpretacji: Polski wykaz wymienia glebę w lasach liściastych, iglastych i mieszanych, także pod świerkiem. Snowarski opisuje preferencję gleb wapiennych i nieczęste notowania. Obecność obok drzewa nie została zamieniona w molekularny dowód związku mikoryzowego. Historyczna kategoria regionalnego zagrożenia nie jest bieżącą krajową ochroną prawną. Zagraniczne miesiące ani statusy czerwonych list nie zastępują polskich danych.
[33] [23]Badanie włoskiego zbioru 4813
Materiał i metoda: Zbiór z 19.08.2012 pochodzi z buczyny koło PratoRotondo, Teramo, 1460 m; zebrał go Bruno de Ruvo, oznaczył Marino Zugna. Opis makro sporządzono ze zdjęć. Suchy materiał rehydratowano wodą lub 5%KOH; preparaty oglądano w wodzie albo 6%amoniakalnej czerwieniKongo. Melzer służył do oceny amyloidalności. Zmierzono 100 dojrzałych zarodników z części niehymenialnych, w projekcji bocznej; pozostałe typy komórek po co najmniej 20 razy. Nie przypisano jednego medium wszystkim pomiarom.
Wyniki: Pełne granice zarodników wynoszą 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, średnieQ 1,04, objętość 410–2030 µm³. Są kuliste do niemal kulistych, hialinowe, nieamyloidalne, z jedną dużą centralną kroplą olejową. Podstawki mają 38,63–68,53×10,39–16,33 µm, zwykle 4, a rzadko 2 zarodniki. Sprzążek nie zaobserwowano w zbadanych tkankach. Zakresy centralne, średnie i źródłowe zastrzeżenia zachowano przy oryginale.
Ograniczenia: To własne obserwacje autora udostępnione przez zbieracza na blogu; wcześniejszej wersji forumAMB nie odczytano. Okaz nie jest polskim pomiarem. Dwie warstwy skórki mają odrębne zakresy szerokości strzępek; nie utworzono z nich jednego bezwarunkowego zakresu. Brak obserwacji komórek marginalnych nie jest dowodem braku wszystkich cystyd.
[34]Rewizja europejskich eksykatów
Materiał i wynik: Tulloss podaje 100 pomiarów z 5 owocników i 4 zbiorów. Pełne granice zarodników to 9,5–25×8,6–25 µm, przy węższych zakresach centralnych 10,3–14,9×9,5–14,3 µm; źródło wyraźnie wspomina nieliczne olbrzymie zarodniki. Podstawki 65–89×13,8–19,1 µm są 4 sterygmowe lub rzadko 2 sterygmowe. Nie podano medium każdego pomiaru. Nie zamieniono notatek Basa o typie w niezależne własne badanie Tullossa.
Dokładne części: Trama blaszek jest bilateralna. Zwykłe strzępki 2,8–5,9 µm odróżniono od naczyniowych 2,8–23 µm. Wydłużone komórki podstawy subhymenium osiągają 74×16,7 µm. Osobno opisany zbiór E.W.Brown, RET270-1, Walia, 20.09.1994, ma strzępki skórki 1,1–7,7 µm i wewnątrzkomórkowy brązowy pigment subpellis. Nie przeniesiono tych własności bezwarunkowo na wszystkie warstwy i kolekcje.
Co pozostaje w dokumentacji: Podboczny cylindryczny wyrostek wnęki, spłaszczenie adaksjalne i cienka ściana odnoszą się do bazydiospory. Rzadki szeroko elipsoidalny kształt wymaga brakującego kwalifikatora częstotliwości. Zasięg żelatynizacji, grubości warstw, różne kształty i ściany komórek osłony zachowują osobne konteksty; nie zastąpiono ich arbitralnym stopniem „silny”.
[32]Dane molekularne i materiał źródłowy
Europa: Varga i in. (2024), tabela 1, podają własny węgierski okaz DB-2018-07-08-5(AD22) z Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 i TEF1α PP273683. Francuski JMM20180914, ITS MN490692, odsyła do Hanssa i Moreau 2020; duński JV05-394, ITS UDB002315, jest oznaczony jako niepublikowany. Wiersze nie są trzema niezależnymi badaniami tej samej polskiej próbki. Poprawna metryka pracy to Mycological Progress 23, artykuł 38; nie 63.
Iran: Praca Resources of Iranian agarics (2022) wymienia dla A. ceciliae ITS OK299150 i LSU OK299170. W tabeli potencjału antyoksydacyjnego przy tym gatunku stoiND. Nie potraktowano tej tabeli jako nowego oznaczenia aktywności ekstraktu ani nie podstawiono irańskich wyników do polskiego sezonu. Sekwencje są identyfikatorami podanymi przez autorów; nie przeprowadzono tu własnego pobrania i ponownego dopasowania sekwencji.
[13] [24]Jadalność i dowody szkodliwości
Oceny i ich podstawa: ČMS ocenia gatunek jako jadalny o małej wartości kulinarnej. Materiał dydaktyczny SFMU umieszcza nazwę Amanita inaurata wśród grzybów toksycznych surowych lub niedogotowanych i oznacza gwiazdką hemolizyny. Ten wpis nie zawiera swoistej analizy toksyny badanego okazu, indywidualnej serii pacjentów ani zwalidowanego czasu i temperatury obróbki. Oceny autorów zapisano z ich warunkami; nie są wynikiem badania klinicznego.
Zgłoszenie z Montany: Rejestr NAMA podaje jeden dorosły przypadek oznaczony Amanita inaurata, Montana, początek 0,6 h, objawy pokarmowe, poty, oczopląs i zamazane widzenie. Zestawienie nie dowodzi tożsamości z europejskim A. ceciliae ani nie przedstawia dla tego wiersza pełnego indywidualnego dochodzenia przyczynowego. Zgłoszenia nie pominięto, ale nie wyprowadzono z niego toksyczności prawidłowo oznaczonego polskiego materiału.
Ograniczenie przeglądu: W sprawdzonych źródłach nie uzyskano pierwotnej, swoistej dla europejskiego gatunku analizy hemolizyn ani pełnej serii klinicznej rozstrzygającej bezpieczeństwo. Nie jest to dowód nieistnienia takich badań. Nie dopisano amatoksyn, muscymolu ani gwarancji odtrucia.
[20] [30] [27] [25]Skład i doświadczenie z ekstraktem
Materiał i metody: Akata i in. (2012) badali anatolijskie owocniki oznaczone jako A. ceciliae, AKATA 3037,850 m. Ekstrakt suszonego materiału przygotowano metanolem. Wykonano test DPPH z odczytem 517 nm po 30 min w ciemności, trzy powtórzenia. Białko oznaczano metodą Kjeldahla, współczynnik 6,25. Nie podano weryfikacji DNA oznaczenia.
Odczyt tabel: Wiersz tabeli 2 podaje 4,65 mg/ml ekstraktu, wydajność 23,2% i RSA 95,35 ± 0,10%. Streszczenie łączy nazwę gatunku z 96,16% i 4,51 mg/ml, natomiast tabela i opis wyników wiążą te drugie liczby z Armillaria mellea. Zapisano odczytany wiersz, wraz z rozbieżnością. Tabela 3: popiół 10,75%, tłuszcz 5,91%, wilgoć 9,34%, białko 31,20%, węglowodany 42,81%; nie określa odrębnie normalizacji względem suchej lub świeżej masy.
Znaczenie: To aktywność chemiczna in vitro, nie wykazane leczenie, dawka spożywcza ani wdrożenie technologiczne. Wynik aktywności i stężenie dotyczą tego samego eksperymentu, choć typy rekordów modelu są odrębne. Brakujące parametry ilościowe i niepodaną podstawę składu zachowano do rozszerzenia modelu.
[18] [15] [16] [17]Poszukiwanie innych zastosowań i droga odwołań
Zakres poszukiwania: Sprawdzono zastosowania lecznicze, zielarskie, techniczne, barwierskie, przyprawowe, kulturowe i biotechnologiczne pod nazwami ceciliae oraz inaurata. Odczytane źródła pierwotne potwierdzają badanie ekstraktu i taksonomii; nie wykazują wdrożenia, leczenia człowieka ani produkcji leku. Tradycyjnego użycia nie wykluczono samym brakiem badań.
Nierozstrzygnięte tropy: Wyszukiwanie wskazało pakistańskie zestawienie Sultany i Qureshi 2007 opisujące nazwę ceciliae jako medicinal. Pełnego źródła nie uzyskano: serwer zwrócił błąd 500. Nie wyprowadzono celu stosowania, dawki ani tożsamości europejskiego gatunku z urywka tabeli. Doniesienia oznaczone aff.ceciliae z Gwatemali i starsze nazwy meksykańskie także nie zostały automatycznie utożsamione z gatunkiem europejskim. Dokładne zapytania i statusy są zachowane w dokumentacji.
[18] [24] [25] [32]Uzupełnienie po rozszerzeniu wspólnego modelu
Sterygmy i subhymenium: W zbiorczym europejskim opisie Tullossa szerokość sterygmy sięga 3,1 mikrometra. Dolnej granicy nie podano. Strefę podhymenialną zmierzono oddzielnie w punktach wst-near (15–35 mikrometrów) i wst-far (50–70 mikrometrów). To dwa różne pomiary źródła; nie utworzono z nich zakresu 15–70 mikrometrów. Liczba warstw pozostaje odrębną informacją wymagającą rozszerzenia modelu.
Skórka kapelusza — odrębne kolekcje: Skórka zbioru E. W. Browna ma 155–220 mikrometrów grubości, a skórka dojrzałego okazu Perreau 475 ma 65–95 mikrometrów. Ten drugi okaz pozostawiono na pokazie przed wysuszeniem. Nie zmieszano kolekcji ani nie przypisano grubości całej skórki jej poszczególnym warstwom. U obu autor opisuje żel przy samej powierzchni, a u Browna jawnie niezżelatynizowaną subpellis i subradialny układ zwykłych strzępek. Hialinowość w zbiorze Zugny dotyczy wyłącznie pokrycia ixocutis, nie pigmentowanej warstwy cutis.
Komórki osłony: W opisie osłony na kapeluszu Tulloss wymienia m.in. kuliste i elipsoidalne komórki oraz ich końcowe położenie i krótkie łańcuszki. Zapis tych części informacji nie zastępuje brakujących określeń „niemal”, kształtu gruszkowatego, udziału komórek wobec strzępek ani osobnego licznika do trzech komórek w łańcuszku. Osłona u podstawy trzonu zbioru Zugny zachowuje swój odrębny zakres.
[32] [34]Weryfikacja występowania — zakres i ograniczenia
Materiał: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Zakres odczytu: Udokumentowana obserwacja.
Data przeglądu: 19.10.2026.
Ograniczenia: To przegląd opublikowanych oznaczeń; nie wykonano ponownego oznaczenia materiału ani genotypowania.
[33] [23]Materiał: Udokumentowany zbiór z województwa podkarpackiego.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Zakres opracowania
Przed ukończeniem rekord wymaga uzupełnienia lub rozliczenia.
- Poszukiwanie regionów występowania wymaga rozliczenia.
Podstawa prawna i zakres oceny
Wyniki analityczne
Skład i aktywność laboratoryjna
- Aktywność badanego ekstraktu
- W badaniu laboratoryjnym ekstrakt metanolowy z owocników AKATA3037 wykazywał aktywność przeciwutleniającą. [18] [15] [16]
- Stężenie ekspozycji badanego materiału
- Materiał badania: wykorzystano materiał — metanolowy z owocników AKATA 3037. Cel badania: test DPPH. Warunki badania obejmują po ekstrakcji metanolem, we frakcji metanolowej. [18] [15] [16]
Stężenie ekspozycji badanego materiału wynosi 4,65 miligrama na mililitr. [18] [15] [16]
Najważniejsze substancje i ich działanie
W badaniach laboratoryjnych prowadzonych na ekstraktach metanolowych z wysuszonych owocników analizowano skład chemiczny i właściwości antyoksydacyjne tkanek.
[4]Wyciągi z owocników wykazały zdolność neutralizacji wolnych rodników w teście DPPH.
[4]Ekstrakty z owocników wykazały w warunkach laboratoryjnych aktywność przeciwutleniającą na poziomie 95,35 ± 0,10% przy stężeniu wyciągu 4,65 mg/ml.
[4]Analiza biochemiczna suchej masy wykazała zawartość 31,20% białka, 42,81% węglowodanów, 5,91% tłuszczu oraz 10,75% popiołu przy wilgotności resztkowej 9,34%.
[4]Aktywność przeciwutleniająca ekstraktów badana w warunkach laboratoryjnych nie stanowi potwierdzenia właściwości leczniczych po spożyciu grzyba.
[4]Badania sekwencji genetycznych w obrębie sekcji Vaginatae potwierdzają odrębność europejskich linii rozwojowych muchomora złotawego.
[13]Siedlisko i występowanie
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Polska | województwo podkarpackie | VI–X |
|
Źródła
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (także [21])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (także [18])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (także [20])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (także [22])
- Marek Snowarski/GRej, Amanita ceciliae (także [23])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015