
Essbar

Erfordert Zubereitung

Roh giftig

Lege deinen Standort fest, um Daten für deine Region zu sehen.
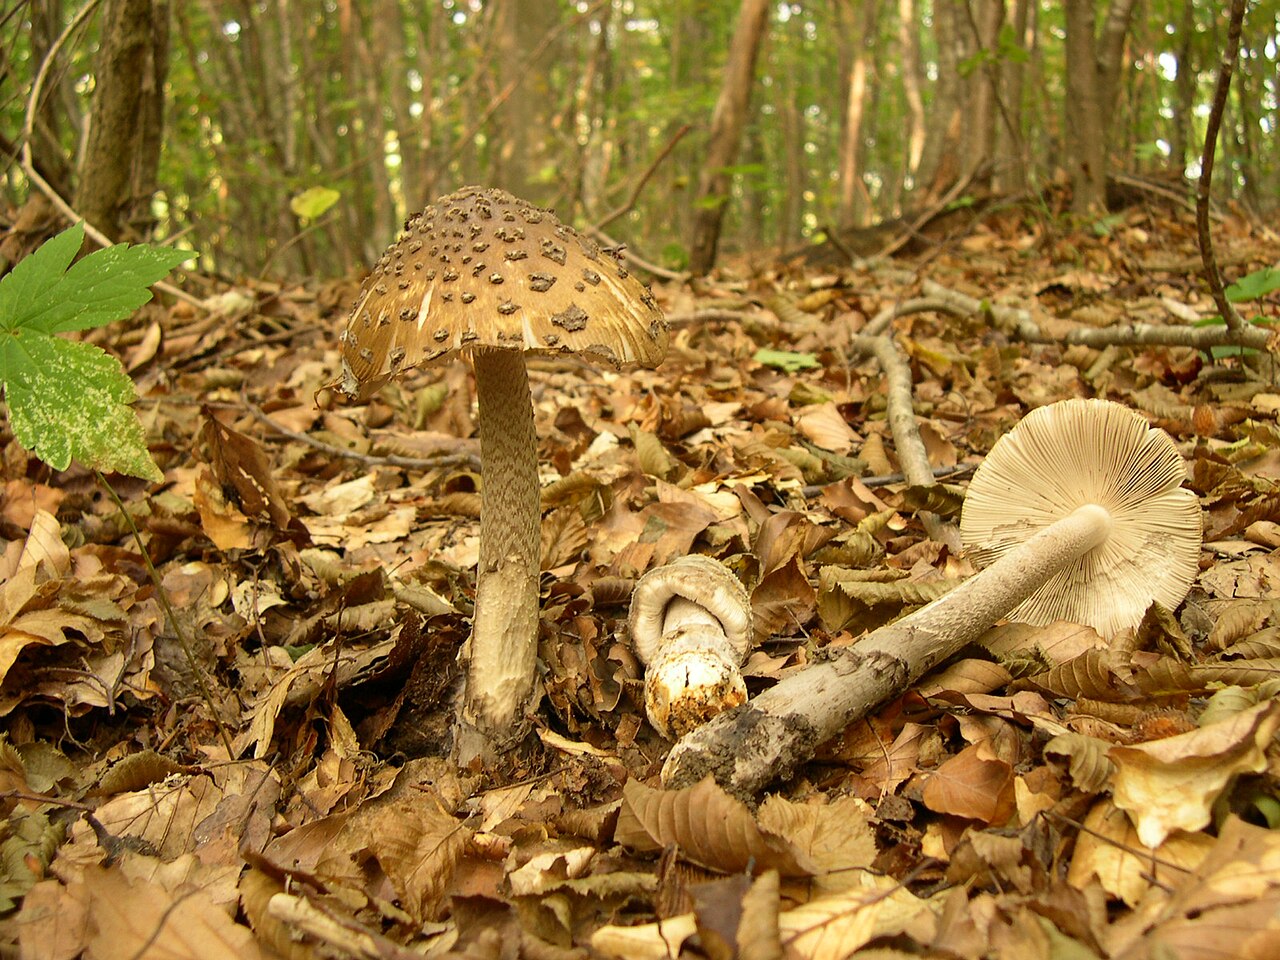
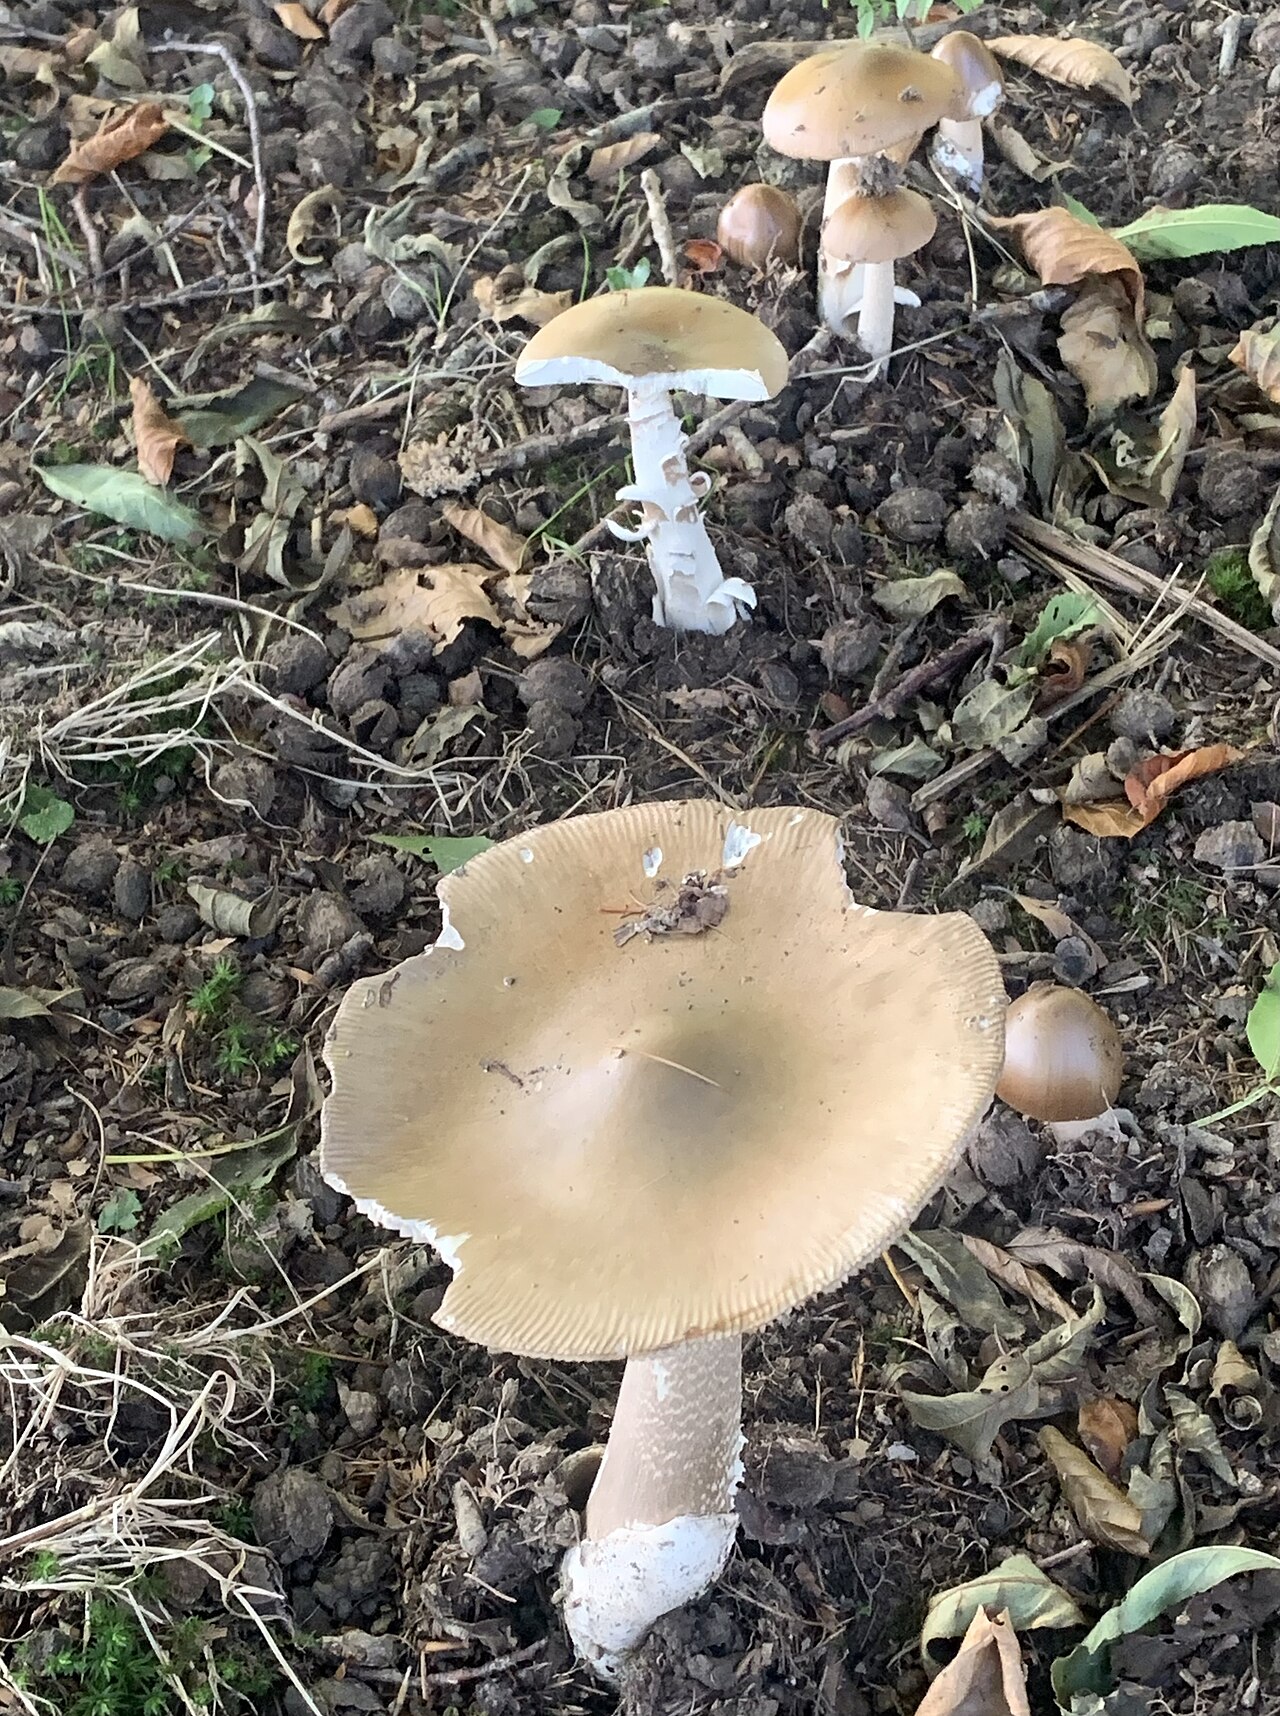
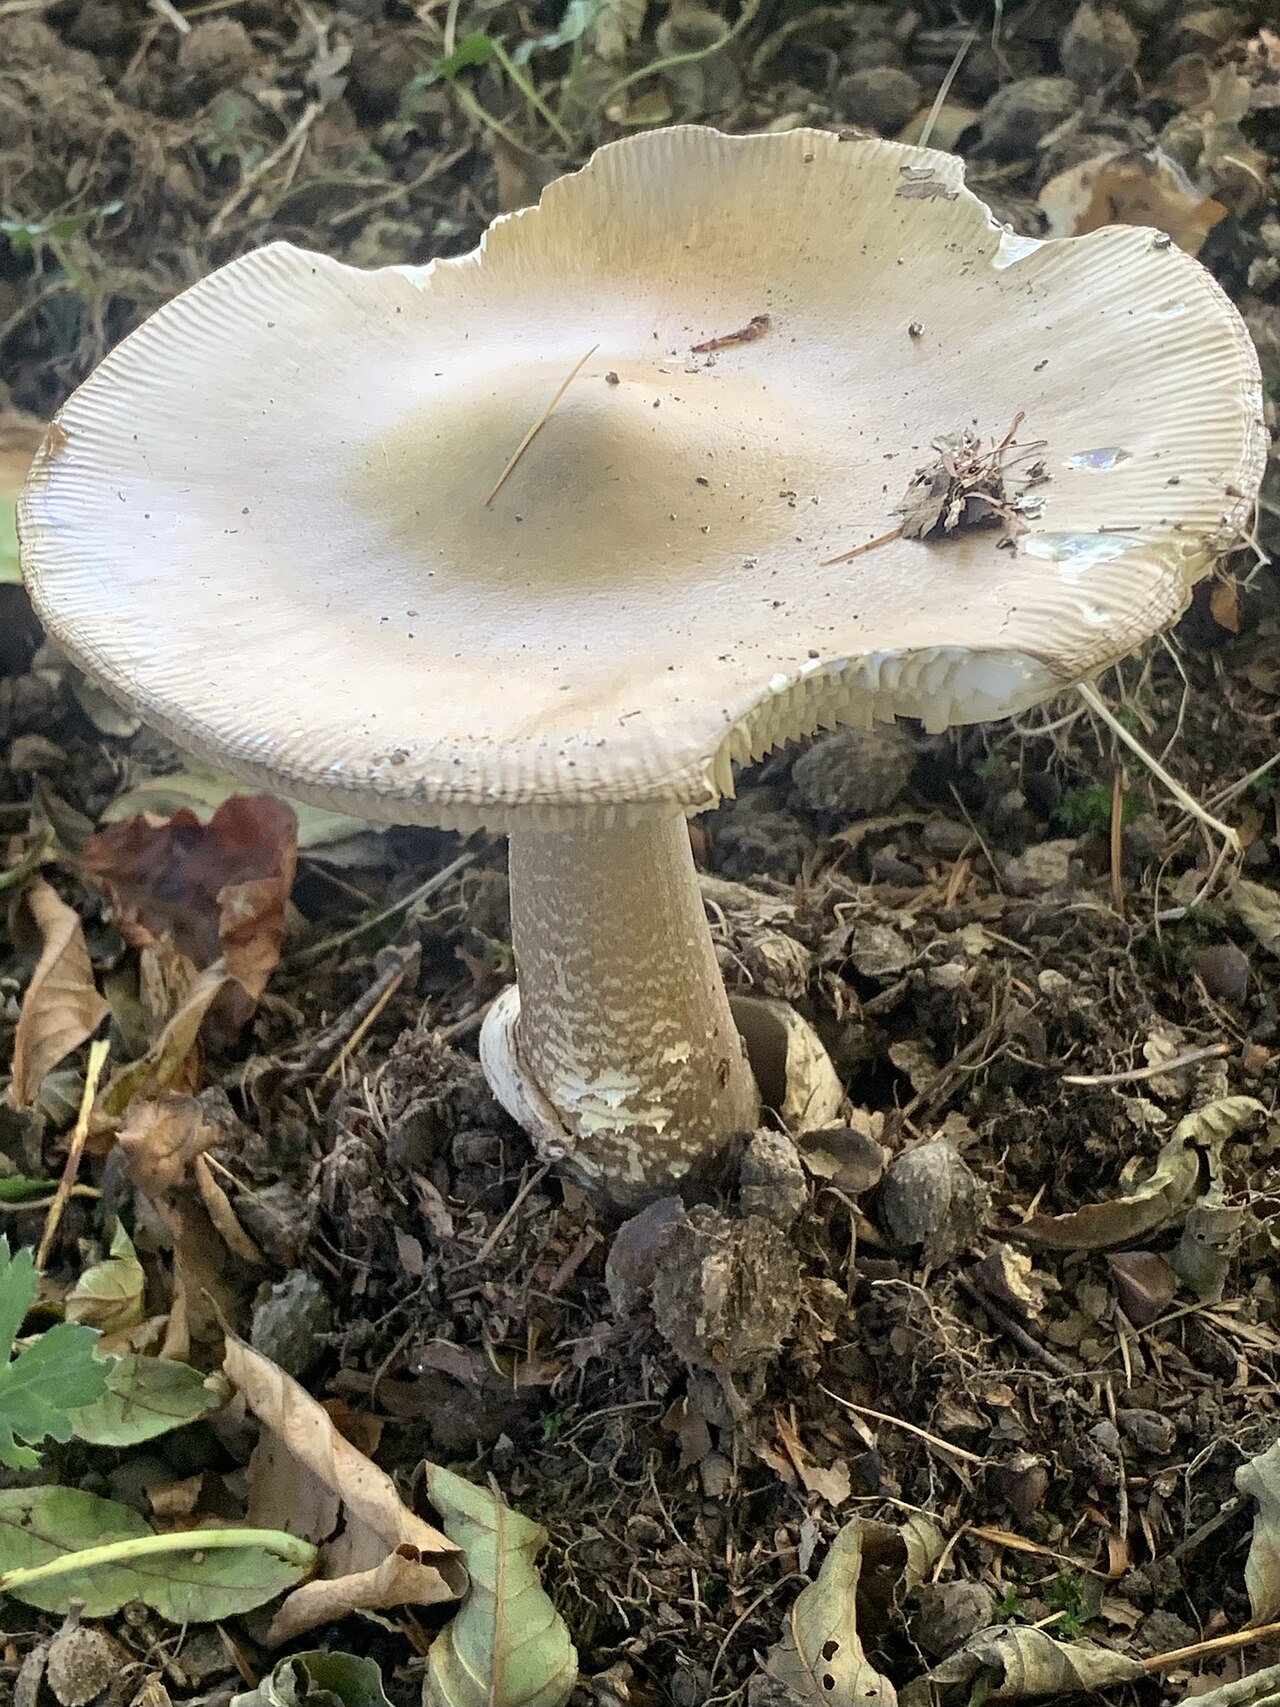
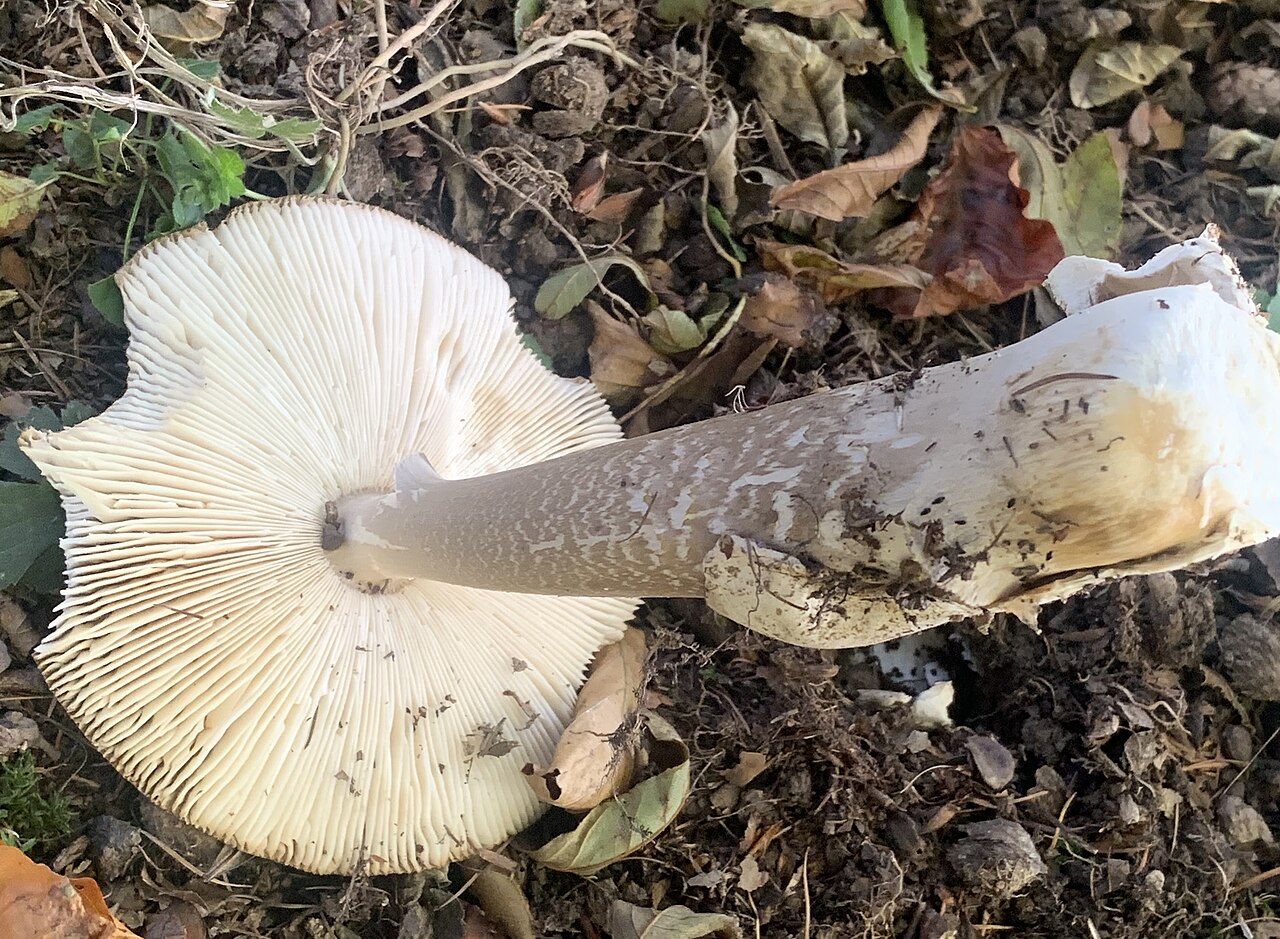
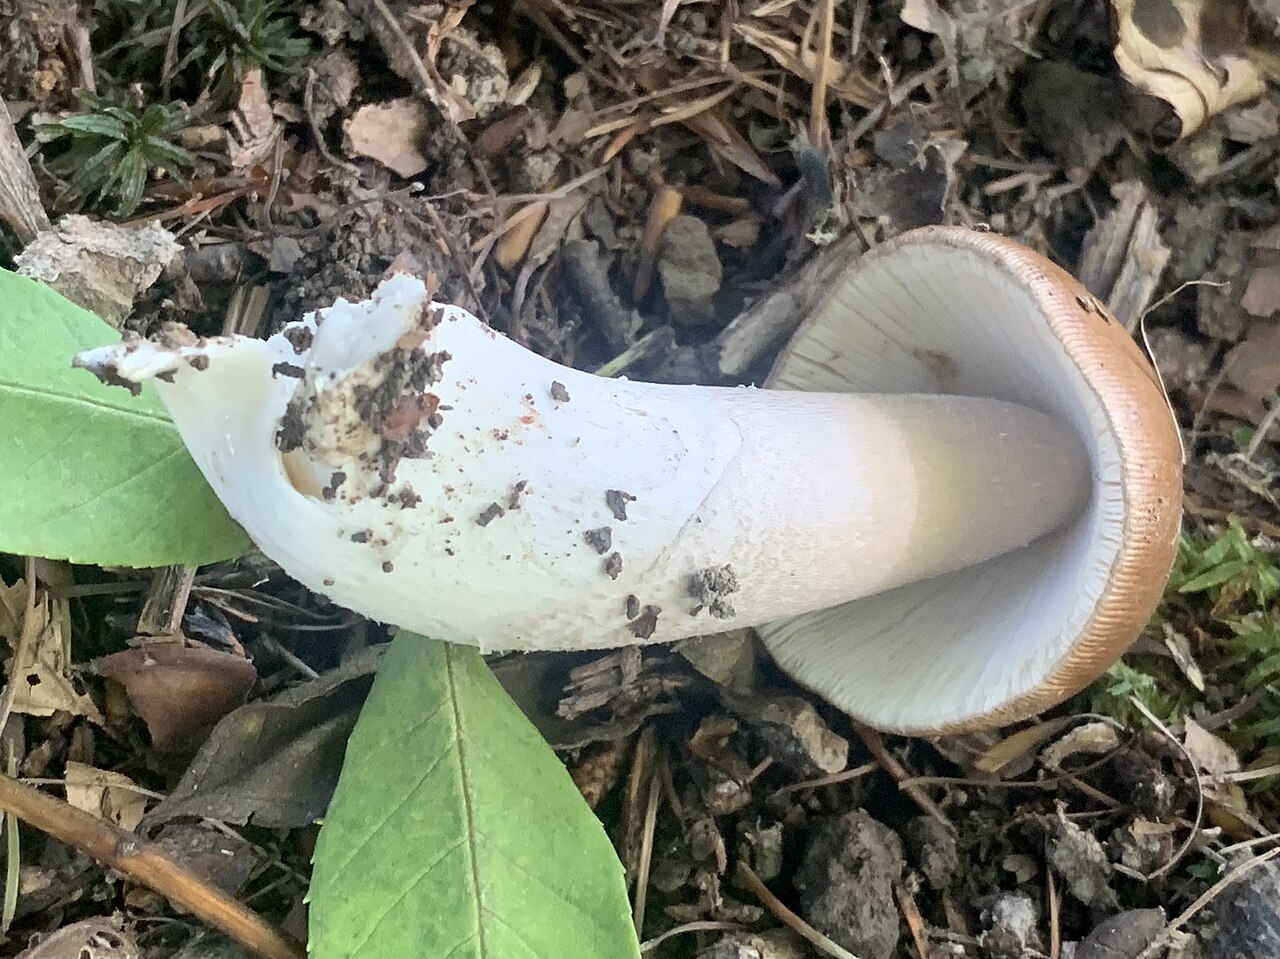
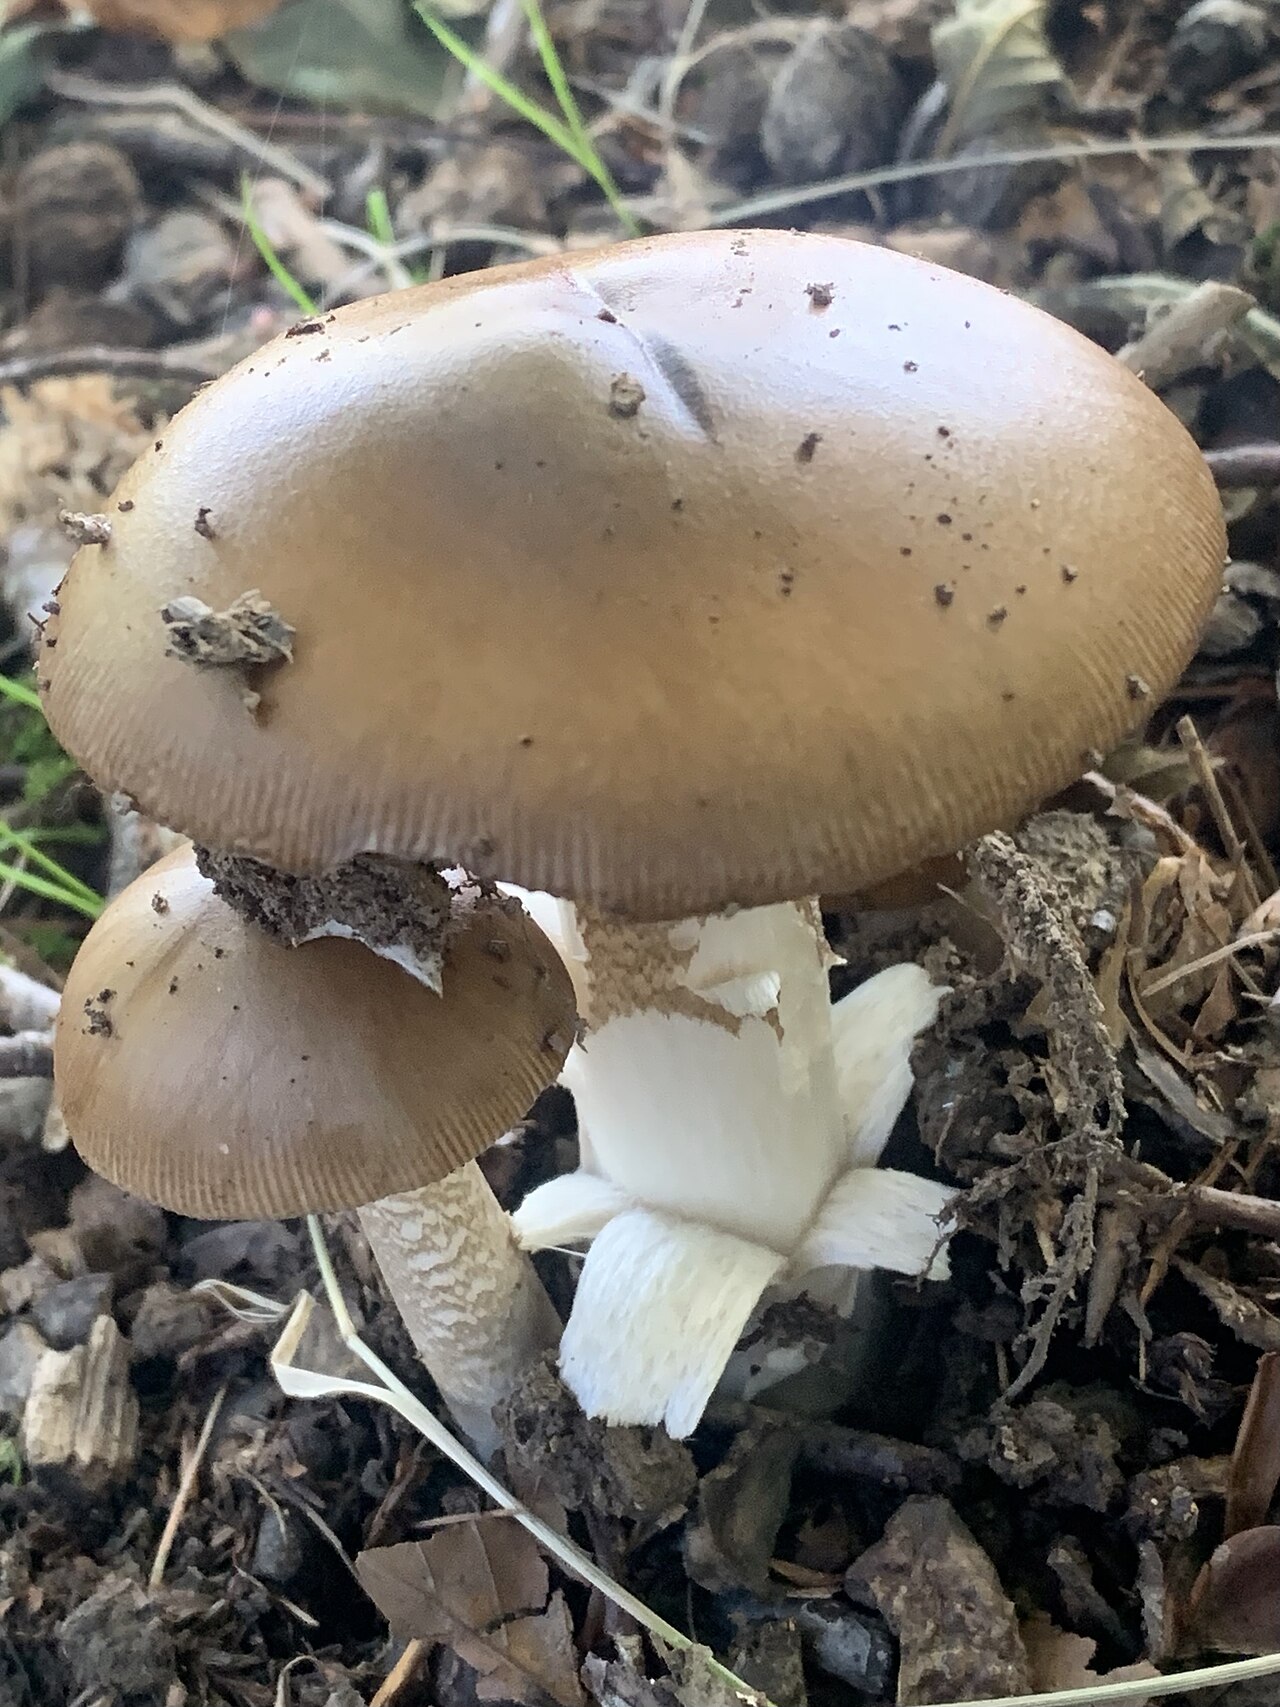
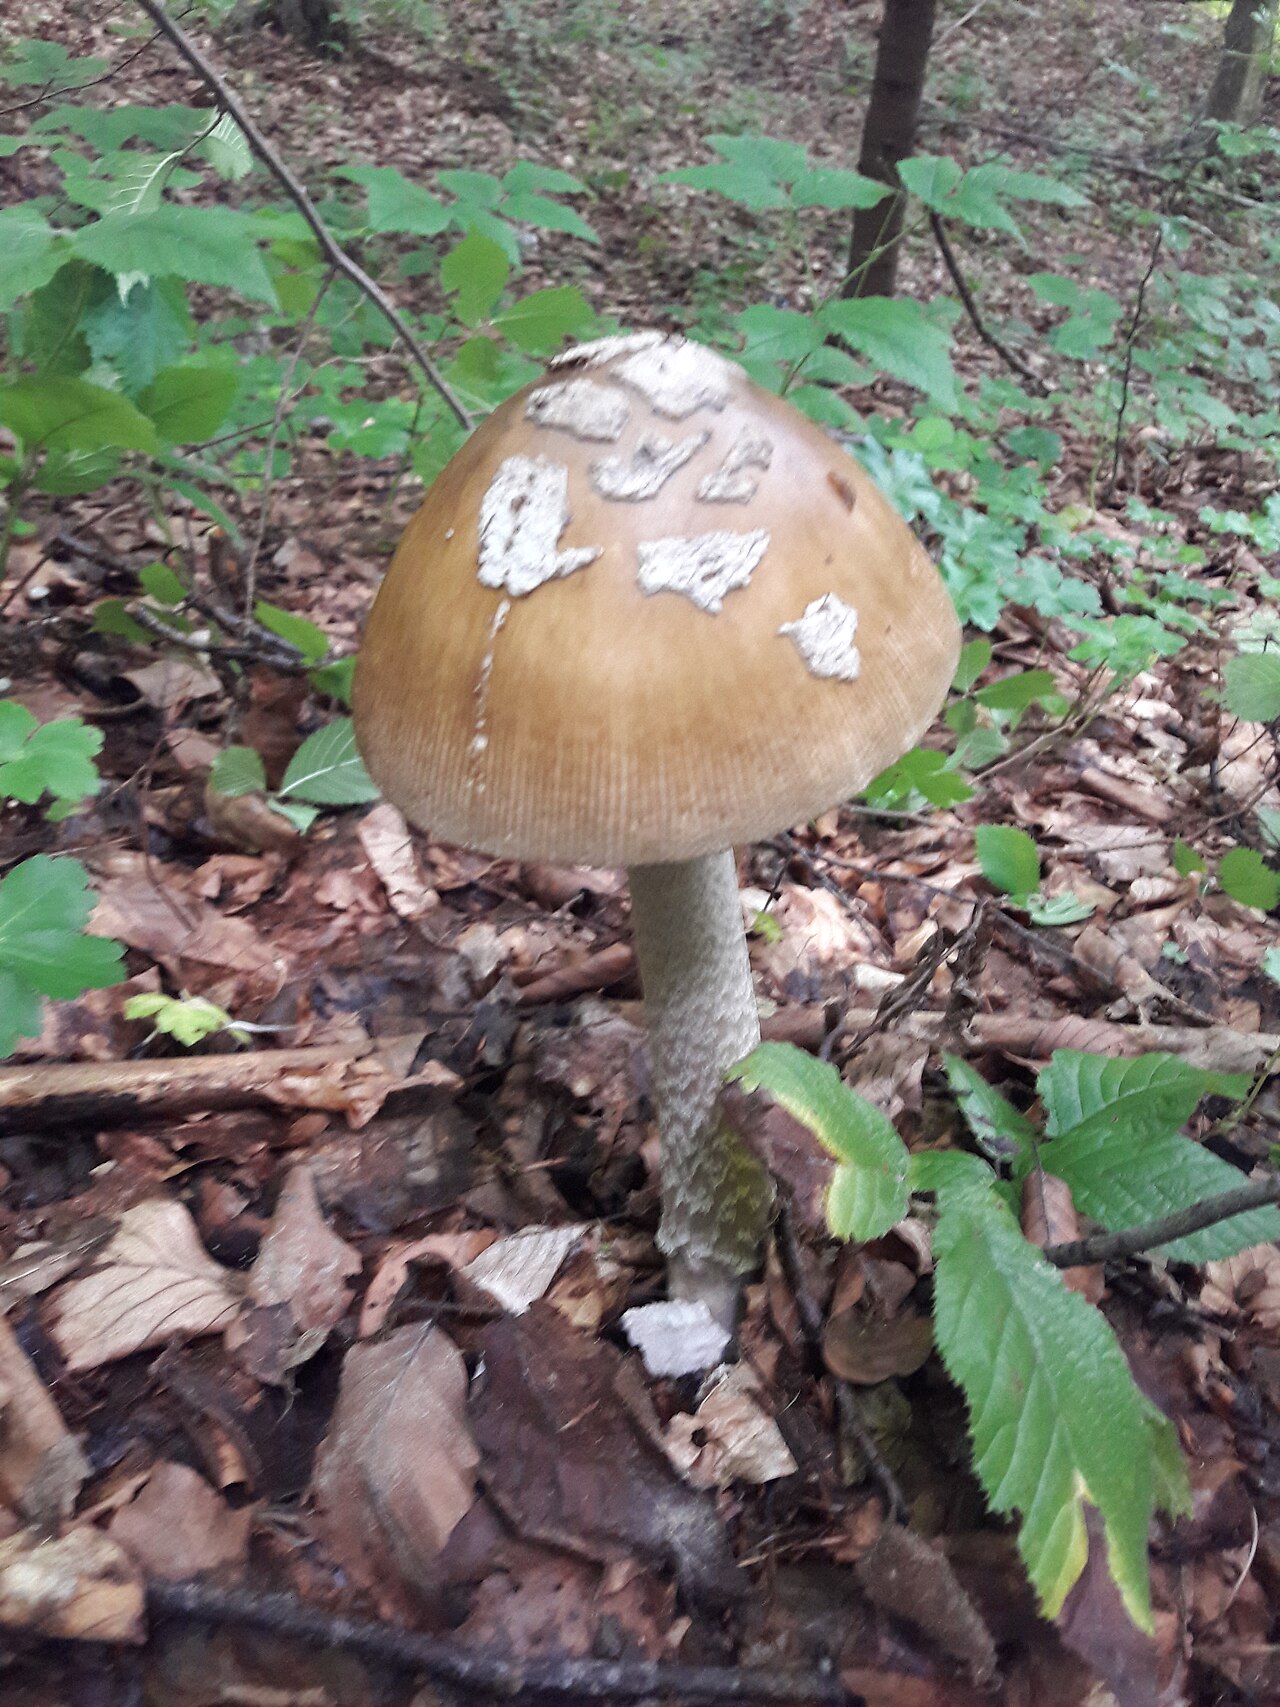
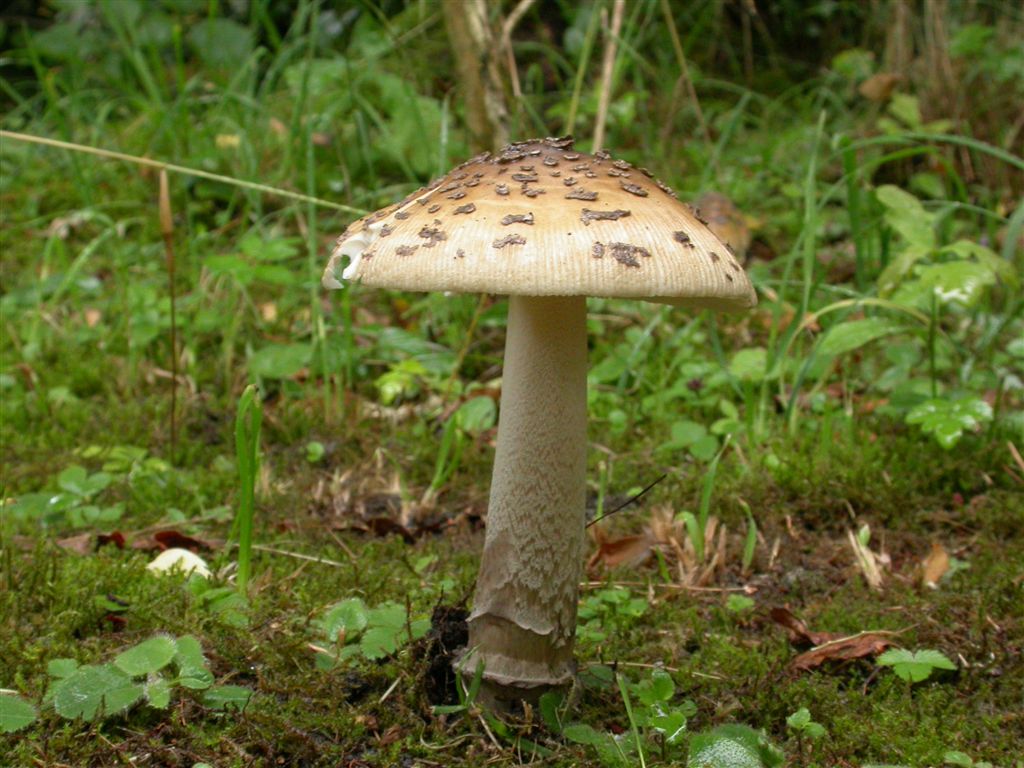
Amanita ceciliae, der Riesen-Scheidenstreifling, ist ein stattlicher, ringloser Blätterpilz. Er zeichnet sich durch seinen großen, graubraunen, am Rand markant gerieften Hut mit flockigen Velumresten und eine zerbrechliche Stielbasis aus. Die Art bewohnt vorwiegend basenreichere Laub- und Mischwälder der gemäßigten Zone und ist sommer- bis herbstaktiv.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut, Stiel.
Hut
- Hutform
- Hutform: eiförmig.
Hutform: flach.
bei jungen Fruchtkörpern: Hutform: eiförmig.
bei reifen Fruchtkörpern: Hutform: halbkugelig.
bei reifen Fruchtkörpern: Hutform: glockenförmig.
bei reifen Fruchtkörpern: Hutform: gewölbt.
bei reifen Fruchtkörpern: Hutform: flach.
Hutform: gewölbt. - Glanz der Hutoberfläche
- bei Trockenheit: Glanz der Hutoberfläche: matt.
- Klebrigkeit und Schleimigkeit des Huts
- bei Nässe: Klebrigkeit und Schleimigkeit des Huts: klebrig.
- Hutfarbe
- Hutfarbe: graubraun.
Hutfarbe: olivenbraun.
Hutfarbe: rotbraun.
Hutfarbe: gelbbraun.
Hutfarbe: graulich.
Hutfarbe: gelb.
Hutfarbe: isabellfarben.
Hutfarbe: olivfarben.
Hutfarbe: kastanienbraun. - Hutrandhaltung
- bei alten Fruchtkörpern: Hutrandhaltung: nach oben gebogen.
Hutrandhaltung: eingerollt. - Oberflächenrelief des Hutrandes
- Oberflächenrelief des Hutrandes: gefurcht.
- Hutdurchmesser
- Der Hutdurchmesser beträgt 50–200 mm.
- Reichweite der Riefung des Hutrands
- Reichweite der Riefung des Hutrands: 0,25 (bezogen auf den Hutradius).
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Lamellen.
Lamellen am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: am Stiel angewachsen (Lamellen).
Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
- Anwachsbreite des Hymenophors
- Anwachsbreite des Hymenophors: schmal angewachsen (Lamellen).
- Allgemeines Lamellenprofil
- Allgemeines Lamellenprofil: gleichmäßig schmal (Lamellen).
- Farbe des Hymenophors
- Farbe des Hymenophors: grau.
Farbe des Hymenophors: weißlich.
Farbe des Hymenophors: cremeweiß. - Lamellenverzweigung
- Lamellenverzweigung: gegabelt.
- Makroskopische Struktur der freien Lamellenschneide
- Makroskopische Struktur der freien Lamellenschneide: gekerbt und flockig.
- Natürliche Farbe der Lamellenschneide
- Natürliche Farbe der Lamellenschneide: schwärzlich.
- Lamellenabstand
- Lamellenabstand: eng stehend.
Lamellenabstand: eng stehend.
Lamellenabstand: dicht stehend. - Lamellendicke
- Lamellendicke: dick.
- Vorhandensein von Zwischenlamellen
- Vorhandensein von Zwischenlamellen: vorhanden.
Stiel und Basis
- Stielform
- Stielform: zylindrisch.
- Stielfarbe
- im oberen Teil des Stiels: Stielfarbe: weiß.
im mittleren Teil des Stiels: Stielfarbe: bräunlich.
im unteren Teil des Stiels: Stielfarbe: bräunlich.
Stielfarbe: weiß.
Stielfarbe: graubraun. - Überzug der Stieloberfläche
- Überzug der Stieloberfläche: flockig.
Überzug der Stieloberfläche: schuppig.
im oberen Teil des Stiels: Überzug der Stieloberfläche: bereift.
im oberen Teil des Stiels: Überzug der Stieloberfläche: seidig.
im unteren Teil des Stiels: Überzug der Stieloberfläche: schuppig. - Muster der Stieloberfläche
- Muster der Stieloberfläche: zickzackförmig.
- Farbe der Stielornamentation
- Farbe der Stielornamentation: weißlich.
- Stielinneres
- Stielinneres: voll.
Stielinneres: hohl. - Konsistenz des Stiels
- Konsistenz des Stiels: brüchig.
- Stiellänge
- Stiellänge: 80–250 mm.
- Stieldurchmesser
- Stieldurchmesser: 10–40 mm.
- Scheide
- Scheide: vorhanden.
Ring
- Vorhandensein eines Rings
- Vorhandensein eines Rings: ohne Ring.
Knolle
- Vorkommen einer Stielknolle
- Vorkommen einer Stielknolle: fehlend.
Hülle an der Basis
- Aufbau des Velums an der Stielbasis
- Aufbau des Velums an der Stielbasis: Bänder.
Aufbau des Velums an der Stielbasis: Bänder.
Aufbau des Velums an der Stielbasis: sackförmig.
- Widerstandsfähigkeit von Scheide und Velum an der Basis gegen Beschädigung
- Widerstandsfähigkeit von Scheide und Velum an der Basis gegen Beschädigung: leicht beschädigbar (Hüllstruktur an der Stielbasis: Bänder).
- Widerstand des Stielfleisches gegen Brechen oder Reißen
- Widerstand des Stielfleisches gegen Brechen oder Reißen: brüchig.
- Farbe der Scheide und des Velums an der Stielbasis
- Farbe der Scheide und des Velums an der Stielbasis: weiß (Hüllstruktur an der Stielbasis: Volva).
Fleisch
- Fleischfarbe
- Fleischfarbe: weiß.
- Geschmack des Fleisches
- Geschmack des Fleisches: süß.
- Widerstand des Fleisches gegen Brechen oder Reißen
- Widerstand des Fleisches gegen Brechen oder Reißen: brüchig.
- Fleischgeruch
- Fleischgeruch: unauffällig (Fleisch).
Fleischgeruch: schwach.
Wo und wann er wächst
- Lebensraum
- Lebensraum: Laubwald.
Lebensraum: Nadelwald.
Lebensraum: Mischwald.
Lebensraum: Park.
Lebensraum: Nadelwald, Laubwald oder Mischwald. - Substrat
- Substrat: Boden.
- Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln.
Wuchsweise der Fruchtkörper: verstreute Gruppen.
Wuchsweise der Fruchtkörper: in kleinen Gruppen. - Vorkommenshäufigkeit
- Vorkommenshäufigkeit: nicht häufig.
- Fruchtzeit
- Die Fruchtkörper erscheinen von Juni bis Oktober.
- Verbreitungsgebiet
- Verbreitungsgebiet: bestätigt.
Essbarkeit und Küche
- Speisewert
- Essbar
- Erforderliche Zubereitung
- Erfordert Zubereitung
- Rohverzehr
- Roh giftig
Recht
- Schutzstatus
- Die Art steht in Polen nicht unter Artenschutz.
- Handel
- Die Art ist in Polen weder für den Handel noch für die Herstellung von Pilzerzeugnissen zugelassen.
Verwechslungsmöglichkeiten
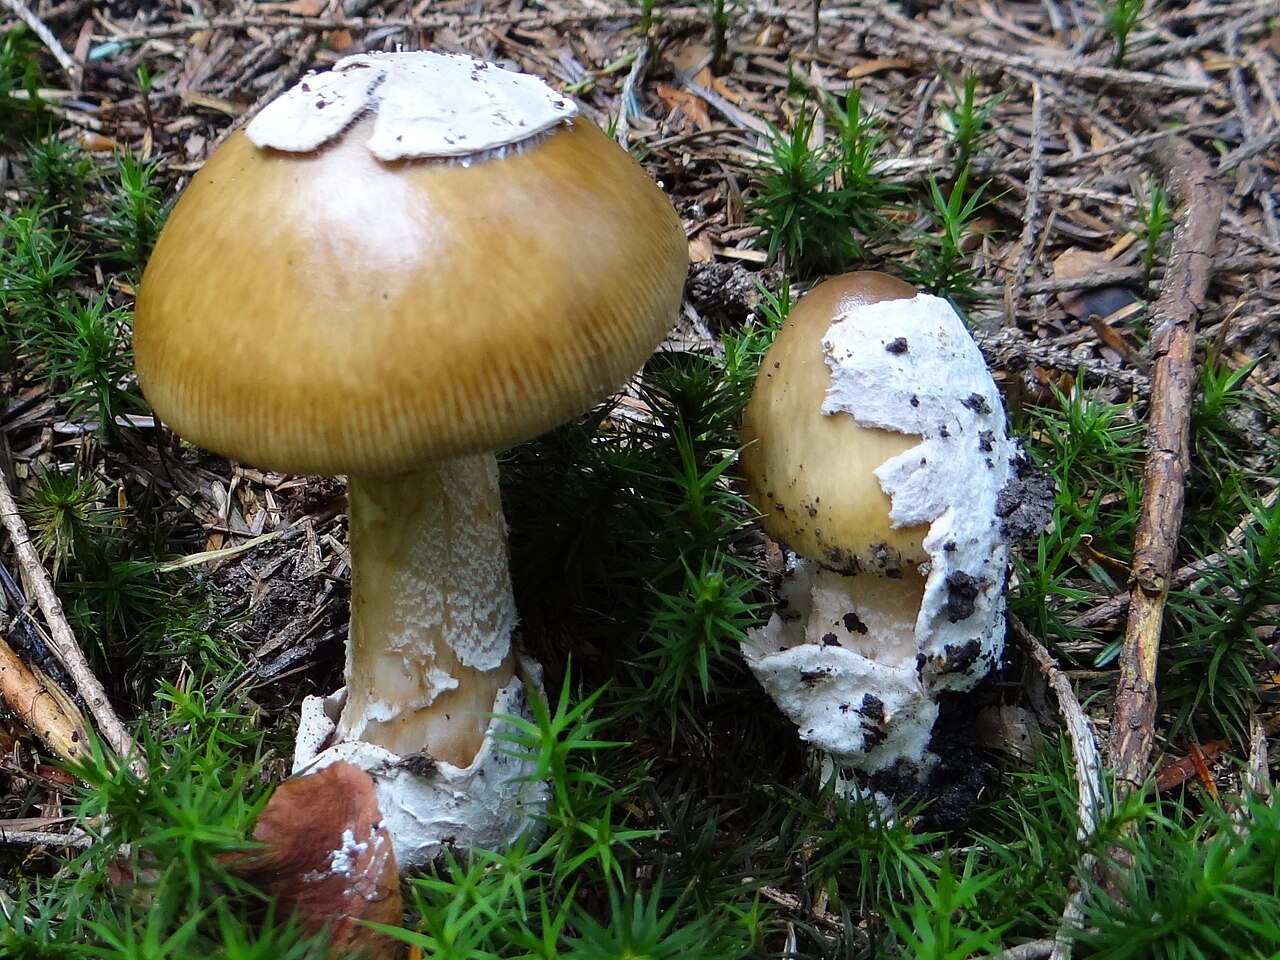
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Bildquelle · CC BY-SA 3.0Amanita submembranacea
Wichtigste Unterschiede
Muchomor brązowooliwkowy (Amanita submembranacea) unterscheidet sich durch das Vorhandensein großer Hüllreste auf dem Hut sowie eine von innen ergrauende Volva und wächst vor allem in Bergwäldern auf sauren Böden.
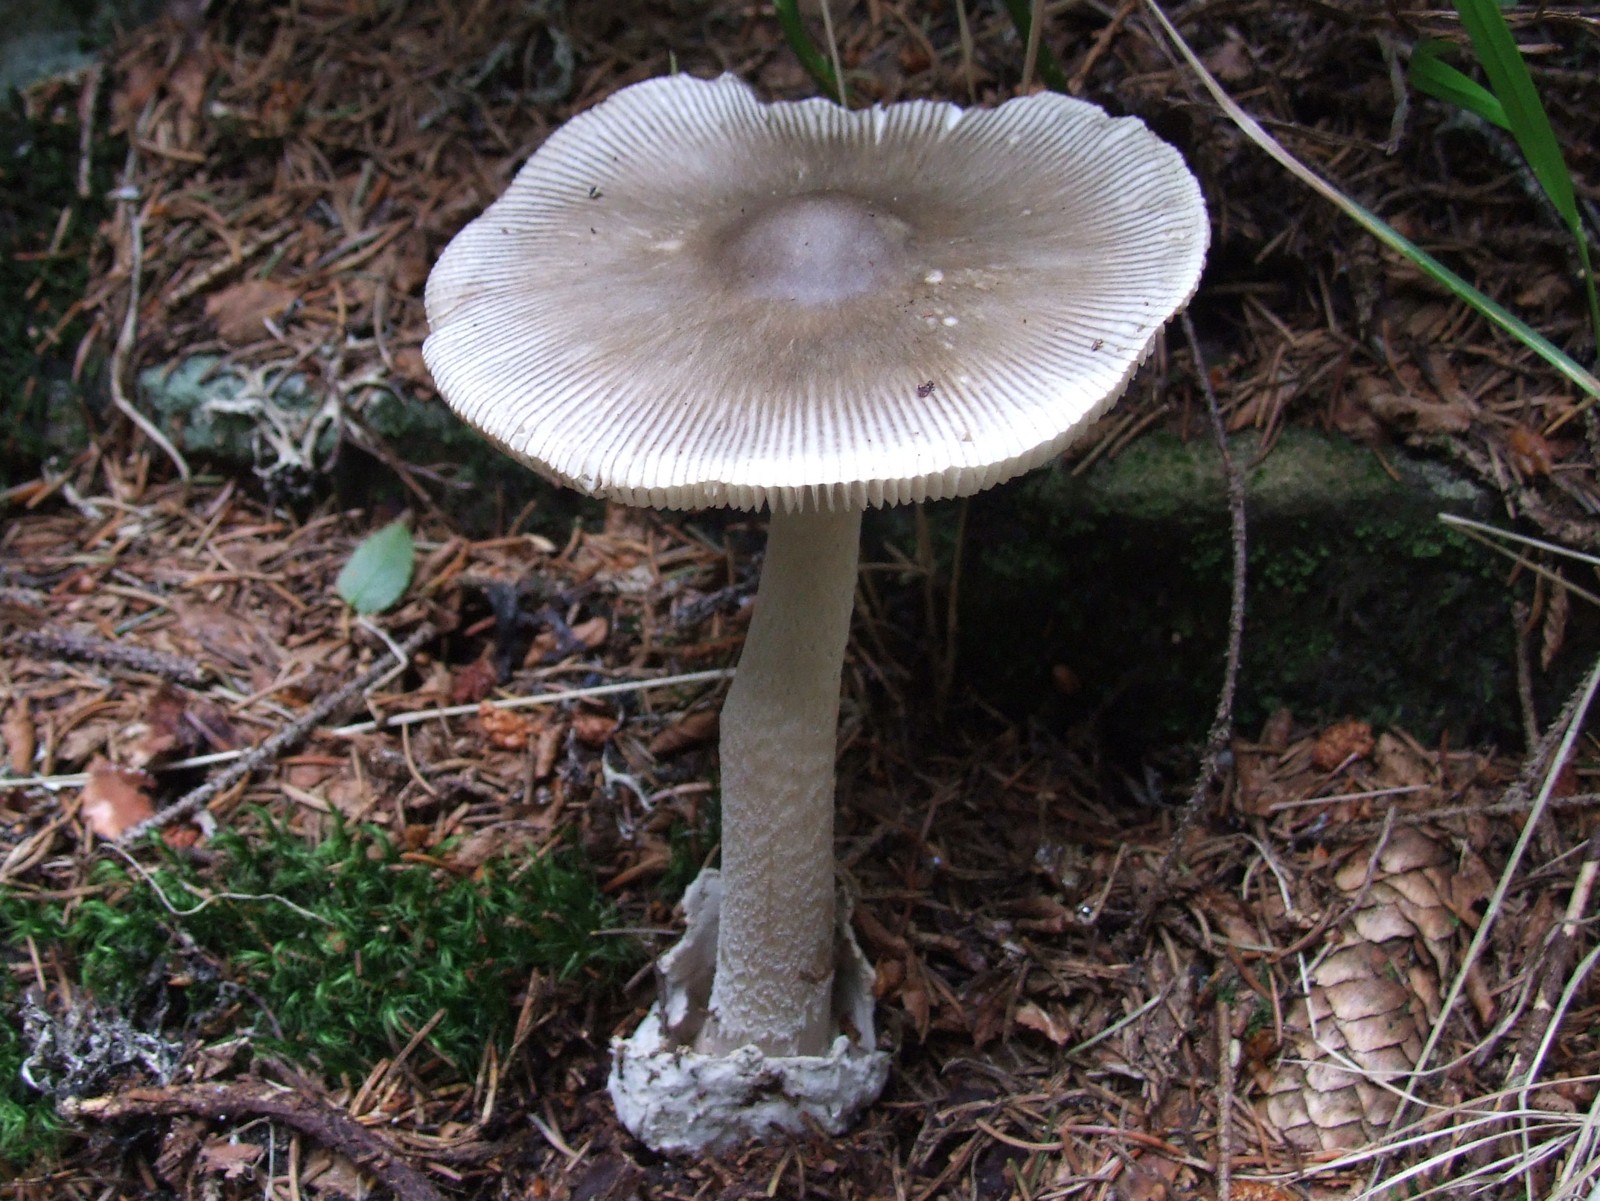
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Bildquelle · CC BY-SA 4.0Amanita vaginata
Wichtigste Unterschiede
Der Graue Wulstling (Amanita vaginata) zeichnet sich durch einen glatten, weißen Stiel ohne dunkle Schuppen und Zickzackmuster aus.
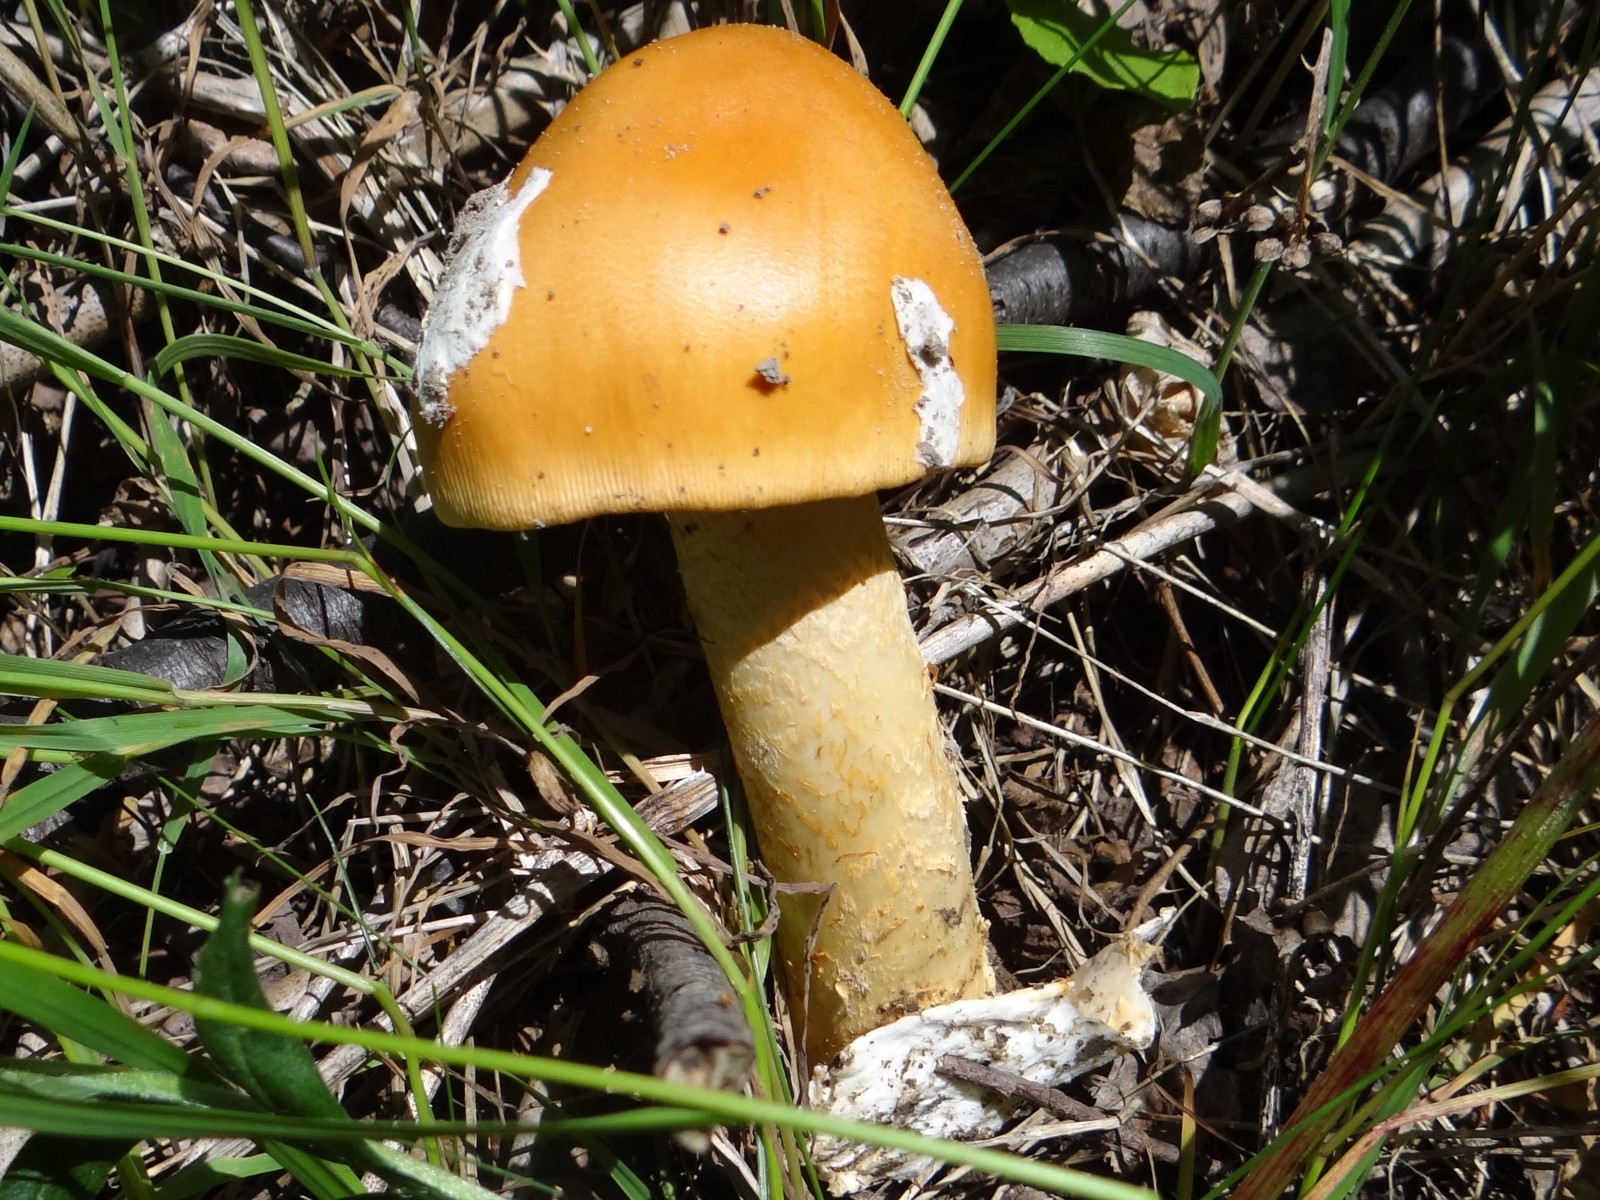
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Bildquelle · CC BY-SA 4.0Amanita crocea
Wichtigste Unterschiede
Der Safran-Scheidenstreifling (Amanita crocea) hat einen leuchtend safran- bis orangegelben Hut und eine innen orange gefärbte Scheide.
Amanita pantherina
Wichtigste Unterschiede
Die Art kann mit dem stark giftigen Pantherpilz (Amanita pantherina) verwechselt werden. Der Pantherpilz besitzt einen deutlichen Ring am Stiel sowie eine Knolle mit Wülsten an der Basis, bei Regen oder bei älteren Exemplaren kann der Ring jedoch verwischen und abfallen.
Amanita friabilis
Wichtigste Unterschiede
Amanita friabilis ist deutlich kleiner (Hut bis 6 cm), hat feinere Sporen und kommt ausschließlich unter Erlen vor.
Amanita fulva
Wichtigste Unterschiede
Der Rotbraune Streifling (Amanita fulva) hat einen Hut in fuchsroten und blassorangefarbenen Tönen sowie einen glatten Stiel und eine rostende Scheide.
FAQ
Woher stammt der Name Ceciliae?
Der Pilz wurde nach Cecilia Berkeley, der Ehefrau des englischen Mykologen Miles Joseph Berkeley, benannt.
Kann man Amanita ceciliae roh verzehren?
Nein, roh ist der Pilz giftig; er muss vor dem Verzehr stets gründlich durchgegart werden.
Welche Baumarten bevorzugt die Art?
Sie wächst vor allem unter Eichen, Rotbuchen, Hainbuchen, Linden und Edelkastanien.
Auf welchen Böden gedeiht dieser Pilz am besten?
Amanita ceciliae bevorzugt basenreiche, lehmige und kalkhaltige Waldböden in warmen Lagen.
Wann ist die typische Wachstumszeit?
Die Fruchtkörper wachsen von Juli bis Oktober, mit einem Schwerpunkt im Spätsommer.
Besitzt der Stiel eine Manschette?
Nein, Amanita ceciliae besitzt keinen Stielring, da sie zur Sektion der Scheidenstreiflinge gehört.
Wie wird der Eigengeschmack des Pilzes beschrieben?
Nach vollständiger Erhitzung hat das Fleisch einen milden, dezenten Pilzgeschmack.
Gibt es für die Art historische Anwendungen?
Historisch belegt sind vor allem Verwendungen als Herbarbelege und Anschauungsmaterial in Museen.
Kommt die Art in ganz Europa vor?
Sie ist in Mittel- und Südeuropa weit verbreitet, fehlt aber im Großteil Skandinaviens.
Warum muss der Pilz vorsichtig transportiert werden?
Das Fleisch ist sehr mürbe und zerbrechlich und neigt rasch zu Druckstellen.
Liebhaber
Namen und Geschichte
- Obowiązująca nazwa krajowa
- Muchomor złotawy
- Obowiązująca nazwa taksonomiczna
- Amanita ceciliae (Berk. & Broome) Bas
- Inne nazwy krajowe
- Riesen-Scheidenstreifling
- Pozostałe nazwy
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Beobachtungen zu Hause
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Nach 2–24 Stunden den Hut anheben und den Niederschlag betrachten.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: weiß.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenform
- Sporenform: kugelig. Sporenform: kugelig. Sporenform: fast kugelig. Sporenform: kugelig. Sporenform: kugelig (fast). Sporenform: kugelig. Sporenform: kugelig (fast).
- Sporenoberfläche
- Sporenoberfläche: glatt. Sporenoberfläche: glatt.
- Sporenmaße
- Länge 9,5–25 µm, Breite 8,6–25 µm.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Ökologie und Verbreitung
- Kalkgehalt des Bodens
- Kalkgehalt des Bodens: kalkhaltig.
- Laubbäume in der Umgebung
- Laubbäume in der Umgebung: Buche.
Laubbäume in der Umgebung: Hainbuche.
Laubbäume in der Umgebung: Eiche. - Nadelbäume in der Umgebung
- Nadelbäume in der Umgebung: Tanne.
- Ernährungsweise
- Ernährungsweise: Mykorrhizal.
Außerkulinarische Verwendungen
Historische und moderne Nutzungen von Amanita ceciliae abseits der Küche sind weitgehend auf forstliche, wissenschaftliche und darstellerische Zwecke beschränkt. Getrocknete Exemplare besitzen eine lange Tradition als Referenzobjekte in wissenschaftlichen Herbarien zur Erforschung der Biodiversität von Buchen- und Eichenwaldgesellschaften. Wegen der markanten Velumschollen auf dem Hut dienten getrocknete Fruchtkörper im 19. und 20. Jahrhundert gelegentlich als Anschauungspräparate in forst- und landwirtschaftlichen Museen. Handwerkliche Anwendungen wie Ledergerbung oder Tinteherstellung sind für diese Art nicht belegt. In modernen waldpädagogischen Einrichtungen wird der Pilz als Schauobjekt verwendet, um die Symbiose alter Laubbäume mit Großpilzen zu verdeutlichen.
Geschichte und Kultur
Die Art wurde von dem britischen Mykologen Miles Joseph Berkeley beschrieben, der das Artepitheton seiner Frau Cecilia Berkeley widmete, um ihre Unterstützung bei seiner wissenschaftlichen Arbeit zu ehren. Dies stellt eines der bekannten historischen Beispiele dar, bei denen eine mykologische Entdeckung im viktorianischen England einer weiblichen Förderin der Naturkunde gewidmet wurde. In britischen und kontinentaleuropäischen Schriften des 19. Jahrhunderts wurde die Art oft wegen ihrer imposanten Größe und ihres ornamentalen Hutes hervorgehoben. Volkskundlich wurde der Riesen-Scheidenstreifling in manchen Regionen als Bote des Spätsommers angesehen, wenn die großen Hüte in lichten Eichenhainen erschienen. Weitergehende mythologische Überlieferungen sind für diese spezifische Art nicht überliefert.
Essbarkeit und Sicherheit
Amanita ceciliae ist im Rohzustand toxisch, da unverarbeitete Fruchtkörper magen-darm-reizende und blutzersetzende Substanzen enthalten. Ein Verzehr ist ausschließlich nach sorgfältiger und vollständiger thermischer Behandlung möglich, da die Hitze diese Inhaltsstoffe neutralisiert. Fruchtkörper sollten zudem zügig verarbeitet werden, da das Fleisch sehr weich und empfindlich gegen Verderb ist. Nach fachgerechtem Erhitzen gilt der Pilz als genießbar mit mildem, unaufdringlichem Pilzaroma. In Mittel- und Osteuropa wird die Art gelegentlich gesammelt und geschätzt, erfordert aber wegen der Brüchigkeit einen behutsamen Transport. In vielen west- und nordeuropäischen Ländern wird sie dagegen von Sammlern wegen der generellen Vorsicht bei Wulstlingen weitgehend ignoriert.
Lebensraum und Vorkommen
Amanita ceciliae bevorzugt wärmebegünstigte Laub- und Laubmischwälder, Parks und sonnige Waldränder. Wichtigste Baumpartner sind Laubhölzer wie Eichen, Buchen, Hainbuchen, Linden und Edelkastanien; nur selten wird die Art unter Nadelbäumen wie Fichten nachgewiesen. Als Substrat dienen humose, lehmige oder kalkhaltige Böden mit guter Nährstoff- und Basenversorgung. Die geografische Verbreitung umfasst weite Teile Europas und gemäßigter Zonen Asiens; historische Berichte über eine weite Verbreitung in Nordamerika beruhen größtenteils auf Fehlbestimmungen anderer Taxa und belegen kein gesichertes Vorkommen von Amanita ceciliae im engeren Sinn, wenngleich ein dortiges Auftreten nicht völlig ausgeschlossen werden kann. In Mittel- und Südeuropa ist die Art in Tieflagen und im Hügelland verbreitet, während sie in Skandinavien nur lokal in den südlichsten Bereichen vorkommt. Die Fruchtkörper erscheinen meist ab Juli und können bei feucht-warmer Witterung bis Ende Oktober gefunden werden. In südeuropäischen Eichenwäldern verschiebt sich der Höhepunkt oft in die feuchteren Monate September und Oktober.
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Speisewert
- Essbar — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, Bewertung des Autors, ohne klinische Sicherheitsuntersuchung
- Rohverzehr
- Giftig
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Liste Amanita inaurata*: roh oder unzureichend gekocht giftig; didaktische Quelle, keine Toxinanalyse der Art
- Speisewert
- Giftig
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Liste Amanita inaurata*: roh oder unzureichend gekocht giftig; didaktische Quelle, keine Toxinanalyse der Art
- Erforderliche Zubereitung
- Erfordert Zubereitung
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Amanita ceciliae (Berk. & Broome) Bas
Wissenschaftliche Namen und Taxonomie
Amanita ceciliae (Berk. & Broome) Bas gehört zur Familie der Wulstlingsverwandten (Amanitaceae) und zur Sektion Vaginatae. Er wurde im Jahr 1854 von Berkeley und Broome unter dem Basionym Agaricus ceciliae beschrieben und von Cornelis Bas in den 80er-Jahren des 20. Jahrhunderts in die Gattung Amanita überführt.
Wissenschaftliche Namen und Taxonomie
In früheren mykologischen Abhandlungen erschien diese Art u. a. unter den Namen Amanita inaurata, Amanitopsis inaurata sowie Amanitopsis ceciliae. Der Name Amanita strangulata wiederum wurde von vielen Autoren im weiteren, mehrdeutigen Sinne (sensu auct. mult.) verwendet.
Historischer Umfang der Namen und Artkonzepte
In der angelsächsischen Literatur wird der Name Snakeskin Grisette verwendet, in der deutschen Riesen-Scheidenstreifling.
Taxon-Umfang und Bestimmungsgrenzen
Taxonomische Untersuchungen zeigten, dass ein Teil der nordamerikanischen Pilze, die früher als A. ceciliae oder A. inaurata beschrieben wurden, zu eigenständigen Arten wie Amanita rhacopus und Amanita variicolor gehört. Das moderne Konzept von A. ceciliae bezieht sich auf europäische Populationen.
Taxon-Umfang und Bestimmungsgrenzen
In phylogenetischen Untersuchungen der Sektion Vaginatae wurde die Stellung des europäischen Taxons A. ceciliae (unter anderem vertreten durch Kollektionen aus Ungarn) mittels Sequenzanalyse von vier Loci bestätigt: ITS, LSU, RPB1 und TEF1-α.
- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[13] [10] [14] [3]
Ökologie und Verbreitung
Labordiagnostik
Dane ustrukturyzowane
Basidien
- Sterigmenlänge der Basidie
- Sterigmenlänge der Basidie: bis 8,4 µm. [34]
- Sporen je Basidie
- Die Sporenzahl je Basidie beträgt 4. [36]
Die Sporenzahl je Basidie beträgt 2. [36]
Die Sporenzahl je Basidie beträgt 2. [34]
Die Sporenzahl je Basidie beträgt 4. [34] - Basidienform
- Basidienform: keulenförmig. [36]
- Breite des Sterigmas
- Breite des Sterigmas: bis 3,1 µm. [34]
- Schnallen
- Schnallen: nicht beobachtet. [36]
Sonstige Labormerkmale
- Fertilität der Lamellenschneide
- Fertilität der Lamellenschneide: steril. [36]
- Messung der subhymenialen Zone
- Messung der subhymenialen Zone: 15–35 µm (wst-near-Messung). [34]
Messung der subhymenialen Zone: 50–70 µm (wst-far-Messung). [34] - Anordnung der Zellen des Velum universale
- Anordnung der Zellen des Velum universale: endständig (auf dem Hut). [34]
Anordnung der Zellen des Velum universale: in kurzen Reihen (auf dem Hut). [34]
Huthaut
- Optisches Erscheinungsbild der Huthauthyphen
- Optisches Erscheinungsbild der Huthauthyphen: hyalin (obere Schicht der Huthaut). [36]
- Anordnung der Huthauthyphen
- Anordnung der Huthauthyphen: annähernd radial. [34]
- Form der Elemente der Huthaut
- Form der Elemente der Huthaut: zylindrisch. [36]
Form der Elemente der Huthaut: zylindrisch. [36] - Breite der Elemente der Huthaut
- Breite der Elemente der Huthaut: 1,1–7,7 µm. [34]
Breite der Elemente der Huthaut: 0,8–3 µm. [36]
Breite der Elemente der Huthaut: 2,5–4 µm. [36] - Verzweigung der Huthauthyphe
- Verzweigung der Huthauthyphe: verzweigt. [34]
- Einbettung der Huthauthyphen in eine gallertige Substanz
- Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden. [36]
Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden (nur an der Oberfläche, in der Oberflächenschicht der Huthaut). [34]
Einbettung der Huthauthyphen in eine gallertige Substanz: keine Gelatinisierung (in der unteren Huthautschicht). [34]
Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden (nur an der Oberfläche, in der Oberflächenschicht der Huthaut, beim reifen Fruchtkörper). [34] - Farbe des Huthautpigments
- Farbe des Huthautpigments: braun. [34]
Reaktionen mit Reagenzien
Sporen
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite: 1,04 (Mittelwert). [32]
- Profil der adaxialen Seite der Basidiospore
- Profil der adaxialen Seite der Basidiospore: abgeflacht. [34]
- Vorhandensein des Hilarfortsatzes der Basidiospore
- Vorhandensein des Hilarfortsatzes der Basidiospore: vorhanden. [34]
- Lage des Hilaranhangs der Basidiospore
- Lage des Hilaranhangs der Basidiospore: fast seitlich. [34]
- Form des Hilaranhängsels der Basidiospore
- Form des Hilaranhängsels der Basidiospore: zylindrisch. [34]
- Sporenfarbe unter dem Mikroskop
- Sporenfarbe unter dem Mikroskop: hyalin. [36]
Sporenfarbe unter dem Mikroskop: hyalin. [34] - Vorhandensein von Lipidkörpern
- Vorhandensein von Lipidkörpern: vorhanden. [36]
- Verhältnis von Sporenlänge zu Sporenbreite
- Verhältnis von Sporenlänge zu Sporenbreite: 0,94–1,14. [36]
Verhältnis von Sporenlänge zu Sporenbreite: 1–1,36. [34] - Sporenform
- Sporenform: kugelig. [10]
Sporenform: kugelig. [9]
Sporenform: fast kugelig. [9]
Sporenform: kugelig. [36]
Sporenform: kugelig (fast). [36]
Sporenform: kugelig. [34]
Sporenform: kugelig (fast). [34] - Sporenvolumen
- Sporenvolumen: 410–2030 µm³. [36]
- Sporenwanddicke
- Sporenwanddicke: dünnwandig. [34]
Hymenophoraltrama
- Typ der Hymenophoraltrama
- Typ der Hymenophoraltrama: bilateral. [34]
- Breite der Tramahyphen
- Breite der Tramahyphen: 2,8–5,9 µm. [34]
- Länge der aufgeblasenen Zelle der Hymenophortrama
- Länge der aufgeblasenen Zelle der Hymenophortrama: bis 74 µm. [34]
- Breite der aufgeblasenen Zelle der Hymenophortrama
- Breite der aufgeblasenen Zelle der Hymenophortrama: bis 16,7 µm. [34]
Untersuchungsmaterial und -methoden
Merkmalsbeschreibung — Quelle und Umfang
Material: Atlasbeschreibung des Fleisches von K.Tejkal/ČMS; Geruch nevýrazný.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: Autorenbeschreibung ohne Nummer der untersuchten Probe; undeutlicher Geruch wurde nicht mit dem chemischen Fehlen von Geruchsstoffen gleichgesetzt.
Mikroskopische Daten — Quelle und Einschränkungen
Material: Mittleres Q der Sporen aus der Kollektion von 4813,100 Messungen des Autors M.Zugna; dasselbe Material wie bei der separaten mikroskopischen Untersuchung, kein neues Experiment.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: Mittelwert direkt vom Autor angegeben; unabhängige Längen- und Breitengrenzen wurden nicht aufgeteilt.
Untersuchung der Zusammensetzung und Aktivität — Akata et al. (2012)
Material: Fruchtkörper aus Anatolien, bestimmt als Amanita ceciliae, AKATA 3037,850 m; Methanolextrakt des getrockneten Materials. DPPH-Test,517 nm,30 min im Dunkeln; drei Wiederholungen.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: In-vitro-Ergebnis, keine bestätigte Behandlung oder sichere Lebensmitteldosis. In dieser Arbeit fehlt eine molekulare Verifizierung der Bestimmung; kein polnisches Material. Das Abstract enthält eine widersprüchliche Zuordnung von 96,16% bei 4,51 mg/ml; die direkt abgelesene Zeile ergibt 95,35 ± 0,10% bei 4,65 mg/ml.
Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[10]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[11]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[6]- In den Quellen dokumentierte Ergebnisse — Sporen je Basidie
- Liczba zarodników na jednej podstawce wynosi 2. [36] [34]
Liczba zarodników na jednej podstawce wynosi 4. [36] [34] - In den Quellen dokumentierte Ergebnisse — Verhältnis von Sporenlänge zu Sporenbreite
- 0,94–1,14 [36]
1–1,36 [34] - In den Quellen dokumentierte Ergebnisse — Hyphenbreite des Velum universale
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [34]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [36]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [36]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [34]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [34]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [34]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [34]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [34]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [36]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [36]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [36]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [36]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [36]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [36]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [36]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [36]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [36]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [36]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [36]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [36]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [34]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [34]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [34]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [10]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Namen und Artabgrenzung
Polnischer Name: Muchomor złotawy ist der im polnischen Verzeichnis von Wojewoda 2003 verwendete Name. Der Autor verweist auf Borowska und Skirgiełło in Garnweidner 1993; eine frühere Ausgabe wurde nicht eingesehen. Das Verzeichnis führt auch den historischen Namen von Domański 1955 a fort. Sechs Namen aus dem Atlas Ekologia.pl wurden als Alternativnamen mit Atlas-Herkunft erfasst. Dies macht sie weder zu offiziellen Namen noch bestätigt es frühere unklare Datensatzbezeichnungen.
Erstbeschreibungen: Berkeley und Broome beschrieben Agaricus ceciliae im Jahr 1854, Eintrag 663, S. 396–397. Bas kombinierte Amanita ceciliae im Jahr 1984, S. 192, nach Überprüfung des Typusmaterials in Kew. Das Jahr 1984 wurde der Publikation selbst entnommen; die frühere Diskrepanz 1983/1984 verbleibt in der Historie. Bas trennte fehlerhafte spätere Verwendungen des Namens strangulatus von der Erstbeschreibung durch Fries 1838, die sich auf eine andere, unklare Art bezog. Das echte Agaricus strangulatus wurde nicht als einfaches Synonym hinzugefügt.
Taxonomischer Umfang und Material außerhalb Europas: Die Bearbeitung betrifft das europäische Konzept Amanita ceciliae, einschließlich des separat dokumentierten ungarischen Exemplars DB-2018-07-08-5/AD22. Dies bedeutet weder eine Neudetermination aller Atlas-Exemplare noch eine Gleichsetzung von mexikanischem oder guatemaltekischem Material von aff. ceciliae oder A. sororcula mit europäischem Material. Lambert und Koautoren grenzten anhand von Morphologie, Typen und ITS aus früheren nordamerikanischen Bestimmungen A. rhacopus und A. variicolor ab. Diese Einschränkung betrifft auch die Übernahme von Fotos, Vergiftungsmeldungen und Speiseberichten.
Vorkommen und Fruktifikation in Polen
Vorkommen und Monate: Wojewoda gibt polnische Fundorte u. a. aus der Umgebung von Elbląg, dem Nationalpark Wielkopolska, Kampinos, Głogów, Dębowiec, Annopol, Babia Góra, den Pieninen und Polesien sowie den Zeitraum Juni–Oktober an. Dies ist eine Literaturübersicht und kein neues Monitoring für ganz Polen. GRej enthält weitere, eindeutig determinierte polnische Beobachtungen. Die Monate wurden aus dem polnischen Verzeichnis übernommen; einzelne Funddaten wurden nicht in Saisonbegrenzungen umgerechnet.
Habitat und Vorsicht bei der Interpretation: Das polnische Verzeichnis nennt Boden in Laub-, Nadel- und Mischwäldern, auch unter Fichten. Snowarski beschreibt eine Bevorzugung von Kalkböden und seltene Nachweise. Das Vorkommen neben einem Baum wurde nicht als molekularer Nachweis einer Mykorrhizabindung gewertet. Eine historische regionale Gefährdungskategorie stellt keinen aktuellen nationalen gesetzlichen Schutz dar. Weder ausländische Monate noch Rote-Liste-Statusangaben ersetzen polnische Daten.
Untersuchung der italienischen Aufsammlung 4813
Material und Methode: Die Aufsammlung vom 19.08.2012 stammt aus einem Buchenwald bei PratoRotondo, Teramo, 1460 m; gesammelt von Bruno de Ruvo, bestimmt von Marino Zugna. Die Makrobeschreibung wurde anhand von Fotos erstellt. Trockenmaterial wurde mit Wasser oder 5%igem KOH rehydriert; die Präparate wurden in Wasser oder 6%igem ammoniakalischem Kongorot mikroskopiert. Melzer diente zur Beurteilung der Amyloidität. Es wurden 100 reife Sporen aus nicht-hymenialen Teilen in Seitenansicht gemessen; die übrigen Zelltypen jeweils mindestens 20-mal. Es wurde nicht allen Messungen ein einziges Medium zugeordnet.
Ergebnisse: Die vollen Sporengrenzen betragen 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, mittleres Q 1,04, Volumen 410–2030 µm³. Sie sind kugelig bis fast kugelig, hyalin, inamyloid, mit einem großen zentralen Öltropfen. Die Basidien messen 38,63–68,53×10,39–16,33 µm, meist mit 4, selten 2 Sporen. Schnallen wurden in den untersuchten Geweben nicht beobachtet. Zentrale Bereiche, Mittelwerte und quellenseitige Vorbehalte wurden wie im Original beibehalten.
Einschränkungen: Dies sind eigene Beobachtungen des Autors, die vom Sammler auf einem Blog bereitgestellt wurden; eine frühere Version im AMB-Forum wurde nicht eingesehen. Das Exemplar ist keine polnische Messung. Zwei Huthautschichten weisen getrennte Bereiche für die Hyphenbreite auf; daraus wurde kein einzelner bedingungsloser Bereich gebildet. Das Fehlen von Beobachtungen marginaler Zellen ist kein Beweis für das Fehlen sämtlicher Zystiden.
Revision europäischer Exsikkate
Material und Ergebnis: Tulloss gibt 100 Messungen von 5 Fruchtkörpern und 4 Aufsammlungen an. Die vollen Sporengrenzen sind 9,5–25×8,6–25 µm, bei engeren zentralen Bereichen von 10,3–14,9×9,5–14,3 µm; die Quelle erwähnt ausdrücklich vereinzelte Riesensporen. Die Basidien 65–89×13,8–19,1 µm sind 4-sporig oder selten 2-sporig. Das Medium wurde nicht für jede Messung angegeben. Die Notizen von Bas zum Typus wurden nicht in eine unabhängige eigene Untersuchung von Tulloss umgewandelt.
Spezifische Strukturen: Das Lamellentrama ist bilateral. Gewöhnliche Hyphen von 2,8–5,9 µm wurden von vaskulären 2,8–23 µm unterschieden. Verlängerte Basalzellen des Subhymeniums erreichen 74×16,7 µm. Die separat beschriebene Aufsammlung E.W.Brown, RET270-1, Wales, 20.09.1994, weist Huthauthyphen von 1,1–7,7 µm und intrazelluläres braunes Pigment in der Subpellis auf. Diese Eigenschaften wurden nicht bedingungslos auf alle Schichten und Aufsammlungen übertragen.
Was in der Dokumentation verbleibt: Ein sublateraler zylindrischer Hilaranhängsel, die adaxiale Abflachung und die dünne Wand beziehen sich auf die Basidiospore. Die seltene breit-elliptische Form erfordert den fehlenden Häufigkeitsqualifikator. Das Ausmaß der Gelatinisierung, Schichtdicken sowie verschiedene Formen und Wände der Hüllzellen behalten getrennte Kontexte; sie wurden nicht durch einen willkürlichen Grad „stark“ ersetzt.
Molekulare Daten und Quellenmaterial
Europa: Varga et al. (2024), Tabelle 1, nennen ein eigenes ungarisches Exemplar DB-2018-07-08-5(AD22) aus Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 und TEF1α PP273683. Der französische Beleg JMM20180914, ITS MN490692, verweist auf Hanss und Moreau 2020; der dänische JV05-394, ITS UDB002315, ist als unveröffentlicht gekennzeichnet. Die Zeilen stellen keine drei unabhängigen Untersuchungen derselben polnischen Probe dar. Die korrekte bibliografische Angabe der Arbeit lautet Mycological Progress 23, Artikel 38; nicht 63.
Iran: Die Arbeit Resources of Iranian agarics(2022) führt für A. ceciliae ITS OK299150 und LSU OK299170 an. In der Tabelle zum antioxidativen Potenzial steht bei dieser Art ND. Diese Tabelle wurde weder als Neubestimmung der Extraktaktivität gewertet noch wurden die iranischen Ergebnisse auf die polnische Saison übertragen. Bei den Sequenzen handelt es sich um die von den Autoren angegebenen Identifikatoren; ein eigener Abruf und ein Re-Alignment der Sequenzen wurden hier nicht durchgeführt.
Essbarkeit und Belege für Schädlichkeit
Bewertungen und deren Grundlage: ČMS bewertet die Art als essbar von geringem kulinarischem Wert. Das Lehrmaterial der SFMU führt den Namen Amanita inaurata unter den roh oder unzureichend gekochten giftigen Pilzen auf und kennzeichnet Hämolysine mit einem Sternchen. Dieser Eintrag enthält keine spezifische Toxinanalyse des untersuchten Belegs, keine individuelle Patientenserie und keine validierte Zubereitungszeit und -temperatur. Die Bewertungen der Autoren wurden mit ihren Bedingungen erfasst; sie sind nicht das Ergebnis einer klinischen Studie.
Meldung aus Montana: Das NAMA-Register nennt einen Fall bei einem Erwachsenen, bezeichnet als Amanita inaurata, Montana, Beginn 0,6 h, Magen-Darm-Symptome, Schweißausbrüche, Nystagmus und verschwommenes Sehen. Die Zusammenstellung belegt weder die Identität mit der europäischen A. ceciliae noch liefert sie für diesen Eintrag eine vollständige individuelle Kausalitätsprüfung. Die Meldung wurde nicht übergangen, es wurde daraus jedoch keine Toxizität von korrekt bestimmtem polnischem Material abgeleitet.
Einschränkung der Übersicht: In den geprüften Quellen wurde weder eine primäre, für die europäische Art spezifische Analyse der Hämolysine noch eine vollständige klinische Serie zur Klärung der Unbedenklichkeit gefunden. Dies ist kein Beweis für das Nichtvorhandensein solcher Studien. Es wurden weder Amatoxine, Muscimol noch eine Entgiftungsgarantie ergänzt.
Zusammensetzung und Experiment mit dem Extrakt
Material und Methoden: Akata et al. (2012) untersuchten anatolische Fruchtkörper, die als A. ceciliae, AKATA 3037,850 m bestimmt wurden. Der Extrakt aus getrocknetem Material wurde mit Methanol hergestellt. Ein DPPH-Test mit Ablesung bei 517 nm nach 30 min im Dunkeln wurde in drei Wiederholungen durchgeführt. Protein wurde nach der Kjeldahl-Methode bestimmt, Faktor 6,25. Eine DNA-Verifizierung der Bestimmung wurde nicht angegeben.
Ablesung der Tabellen: Die Zeile von Tabelle 2 gibt 4,65 mg/ml Extrakt, eine Ausbeute von 23,2% und RSA von 95,35 ± 0,10% an. Die Zusammenfassung verknüpft den Artnamen mit 96,16% und 4,51 mg/ml, während die Tabelle und die Ergebnisbeschreibung diese zweiten Zahlen mit Armillaria mellea verknüpfen. Die abgelesene Zeile wurde samt der Diskrepanz erfasst. Tabelle 3: Asche 10,75%, Fett 5,91%, Feuchtigkeit 9,34%, Protein 31,20%, Kohlenhydrate 42,81%; sie spezifiziert die Normalisierung bezogen auf Trocken- oder Frischmasse nicht gesondert.
Bedeutung: Dies ist eine chemische In-vitro-Aktivität, keine nachgewiesene medizinische Behandlung, keine Nahrungsmitteldosis und keine technologische Umsetzung. Das Aktivitätsergebnis und die Konzentration beziehen sich auf dasselbe Experiment, auch wenn die Datensatztypen des Modells getrennt sind. Fehlende quantitative Parameter und die nicht angegebene Zusammensetzungsbasis wurden für eine Modellerweiterung vorbehalten.
Suche nach weiteren Verwendungen und Nachweisweg
Suchumfang: Geprüft wurden medizinische, phytotherapeutische, technische, färberische, würzende, kulturelle und biotechnologische Verwendungen unter den Namen ceciliae sowie inaurata. Die ausgewerteten Primärquellen bestätigen Extrakt- und Taxonomieuntersuchungen; sie belegen keine praktische Umsetzung, keine Behandlung von Menschen und keine Arzneimittelherstellung. Eine traditionelle Verwendung wurde allein durch das Fehlen von Studien nicht ausgeschlossen.
Ungelöste Spuren: Die Recherche wies auf eine pakistanische Zusammenstellung von Sultana und Qureshi 2007 hin, die den Namen ceciliae als medicinal beschreibt. Die vollständige Quelle konnte nicht beschafft werden: Der Server meldete den Fehler 500. Aus dem Tabellenfragment wurden weder Verwendungszweck, Dosierung noch die Identität der europäischen Art abgeleitet. Fundmeldungen mit der Bezeichnung aff.ceciliae aus Guatemala und ältere mexikanische Namen wurden ebenfalls nicht automatisch mit der europäischen Art gleichgesetzt. Genaue Abfragen und Statusangaben sind in der Dokumentation festgehalten.
Ergänzung nach Erweiterung des gemeinsamen Modells
Sterigmen und Subhymenium: In Tulloss' zusammenfassender europäischer Beschreibung erreicht die Sterigmenbreite 3,1 Mikrometer. Eine Untergrenze ist nicht angegeben. Die subhymeniale Zone wurde an den Messpunkten wst-near (15–35 Mikrometer) und wst-far (50–70 Mikrometer) separat gemessen. Dies sind zwei unterschiedliche Messungen der Quelle; daraus wurde kein Bereich von 15–70 Mikrometer gebildet. Die Anzahl der Schichten bleibt eine separate Information, die eine Modellerweiterung erfordert.
Huthaut — separate Kollektionen: Die Huthaut der Aufsammlung von E. W. Brown ist 155–220 Mikrometer dick, und die Huthaut des reifen Exemplars von Perreau 475 misst 65–95 Mikrometer. Letzteres Exemplar verblieb vor dem Trocknen in einer Ausstellung. Die Kollektionen wurden weder vermischt noch wurde die Dicke der gesamten Huthaut ihren einzelnen Schichten zugewiesen. Bei beiden beschreibt der Autor Schleim direkt an der Oberfläche, bei Brown zudem eine deutlich ungelatinierte Subpellis und eine subradiale Anordnung der gewöhnlichen Hyphen. Die Hyalinität in Zugnas Aufsammlung betrifft ausschließlich den Ixocutis-Überzug, nicht die pigmentierte Cutis-Schicht.
Velumzellen: Bei der Beschreibung des Huthüllrestes erwähnt Tulloss unter anderem kugelige und ellipsoidische Zellen sowie deren terminale Lage und kurze Kettchen. Die Erfassung dieser Informationsteile ersetzt nicht die fehlenden Angaben „nahezu“, birnenförmig, den Anteil der Zellen gegenüber Hyphen oder einen separaten Zähler von bis zu drei Zellen in einer Kette. Das Velum an der Stielbasis von Zugnas Aufsammlung behält seinen separaten Umfang.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Erfassungsumfang: Dokumentierte Beobachtung.
Überprüfungsdatum: 19.10.2026.
Einschränkungen: Dies ist eine Übersicht veröffentlichter Bestimmungen; es wurde weder eine Nachbestimmung des Materials noch eine Genotypisierung durchgeführt.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Udokumentowany zbiór z województwa podkarpackiego.
Leseumfang: Quellenauszüge.
Ein Quellenauszug wurde gelesen; Volltext und Methoden wurden nicht überprüft.
Überprüfungsdatum: 21.10.2026.
Einschränkungen: Die ursprüngliche Bestimmung und der Begriffsumfang wurden beibehalten. Es wurde weder eine Neubegutachtung von Belegen noch das Lesen aller von der Quelle zitierten Publikationen deklariert.
Bearbeitungsumfang
Vor dem Abschluss erfordert der Datensatz eine Ergänzung oder Abrechnung.
- Die Suche nach Vorkommensregionen erfordert eine Abrechnung.
Rechtsgrundlage und Bewertungsumfang
Analytische Ergebnisse
Zusammensetzung und Laboraktivität
- Aktivität des untersuchten Extrakts
- Aktivität des untersuchten Extrakts: antioxidative Aktivität (Extrakt, Aktivität nachgewiesen, methanolischer Extrakt aus Fruchtkörpern AKATA3037). [32]
- Expositionskonzentration des untersuchten Materials
- Expositionskonzentration des untersuchten Materials: 4,65 mg/ml (DPPH, Extrakt, methanolischer Extrakt aus Fruchtkörpern AKATA3037, berichteter Wert). [32]
Wichtigste Inhaltsstoffe und ihre Wirkung
Wichtigste Inhaltsstoffe und ihre Wirkung
In Laboruntersuchungen an Methanolextrakten aus getrockneten Fruchtkörpern wurden die chemische Zusammensetzung und die antioxidativen Eigenschaften der Gewebe analysiert.
Wichtigste Inhaltsstoffe und ihre Wirkung
Extrakte aus den Fruchtkörpern zeigten im DPPH-Test die Fähigkeit zur Neutralisierung freier Radikale.
Wichtigste Inhaltsstoffe und ihre Wirkung
Extrakte aus den Fruchtkörpern zeigten unter Laborbedingungen eine antioxidative Aktivität von 95,35 ± 0,10% bei einer Extraktkonzentration von 4,65 mg/ml.
Wichtigste Inhaltsstoffe und ihre Wirkung
Die biochemische Trockenmasseanalyse ergab einen Gehalt von 31,20% Protein, 42,81% Kohlenhydraten, 5,91% Fett sowie 10,75% Asche bei einer Restfeuchte von 9,34%.
Wichtigste Inhaltsstoffe und ihre Wirkung
Die unter Laborbedingungen untersuchte antioxidative Aktivität von Extrakten stellt keine Bestätigung therapeutischer Wirkungen nach dem Verzehr des Pilzes dar.
Wichtigste Inhaltsstoffe und ihre Wirkung
Genetische Sequenzuntersuchungen innerhalb der Sektion Vaginatae bestätigen die Eigenständigkeit der europäischen Entwicklungslinien des Riesen-Scheidenstreiflings.
Lebensraum und Vorkommen
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Fruchtbildung | Quellen |
|---|---|---|---|
| Polen | Woiwodschaft Karpatenvorland | VI–X |
|
Quellen
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (także [22])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (także [19])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (także [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (także [23])
- Marek Snowarski/GRej, Amanita ceciliae (także [24])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- Muchomor złotawy — czytelny opis materiału i źródłowe wyniki
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015