
Jedlý

Vyžaduje úpravu

Za syrova jedovatý

Nastavte polohu, abyste viděli údaje pro svůj region.
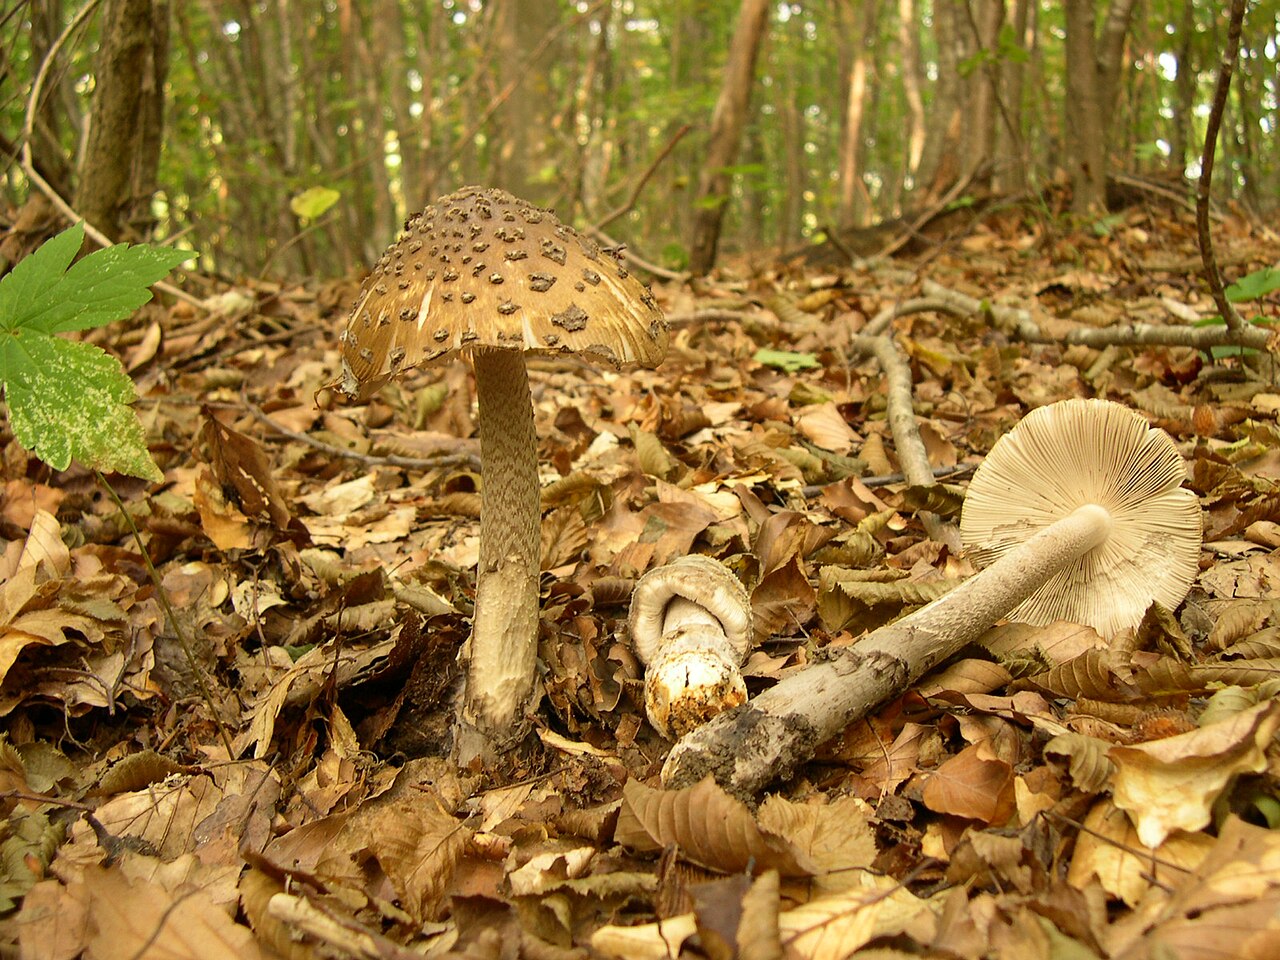
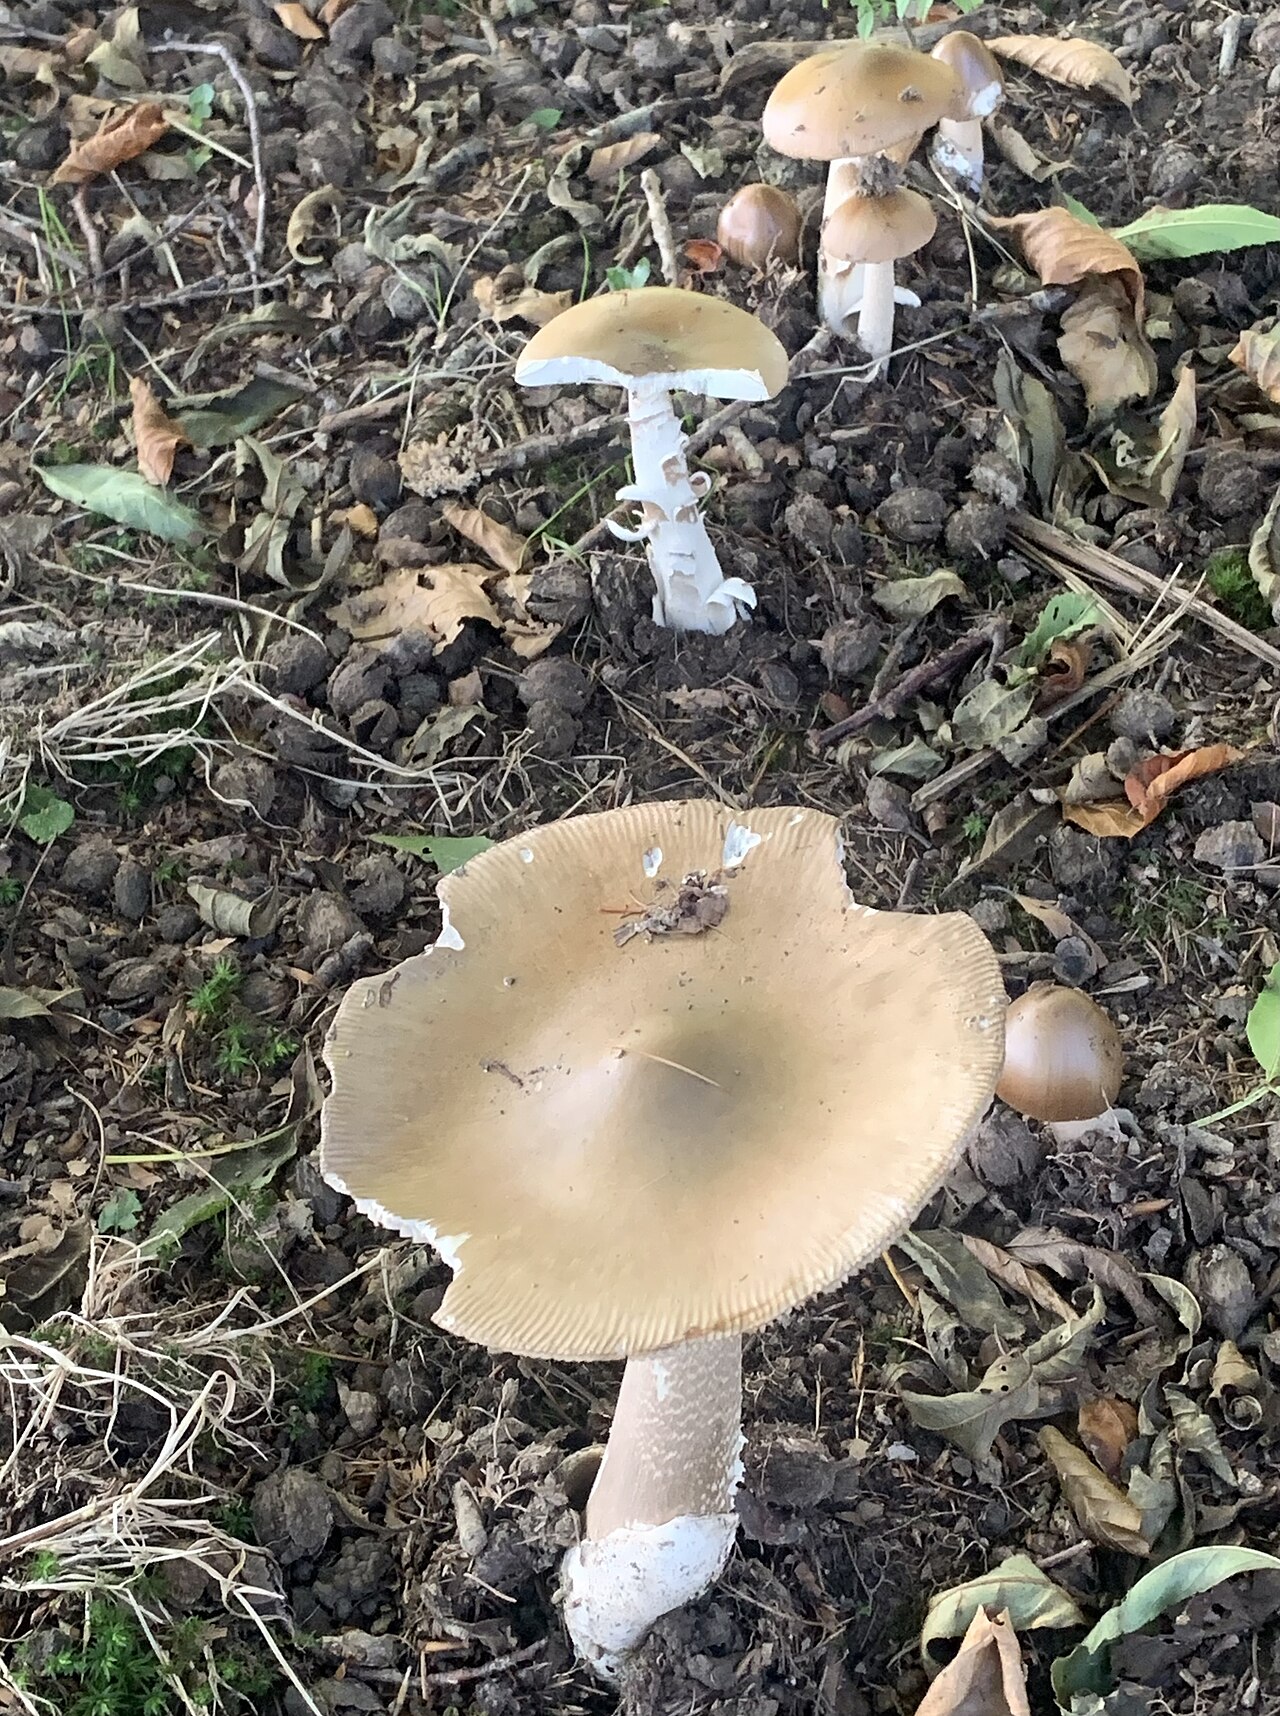
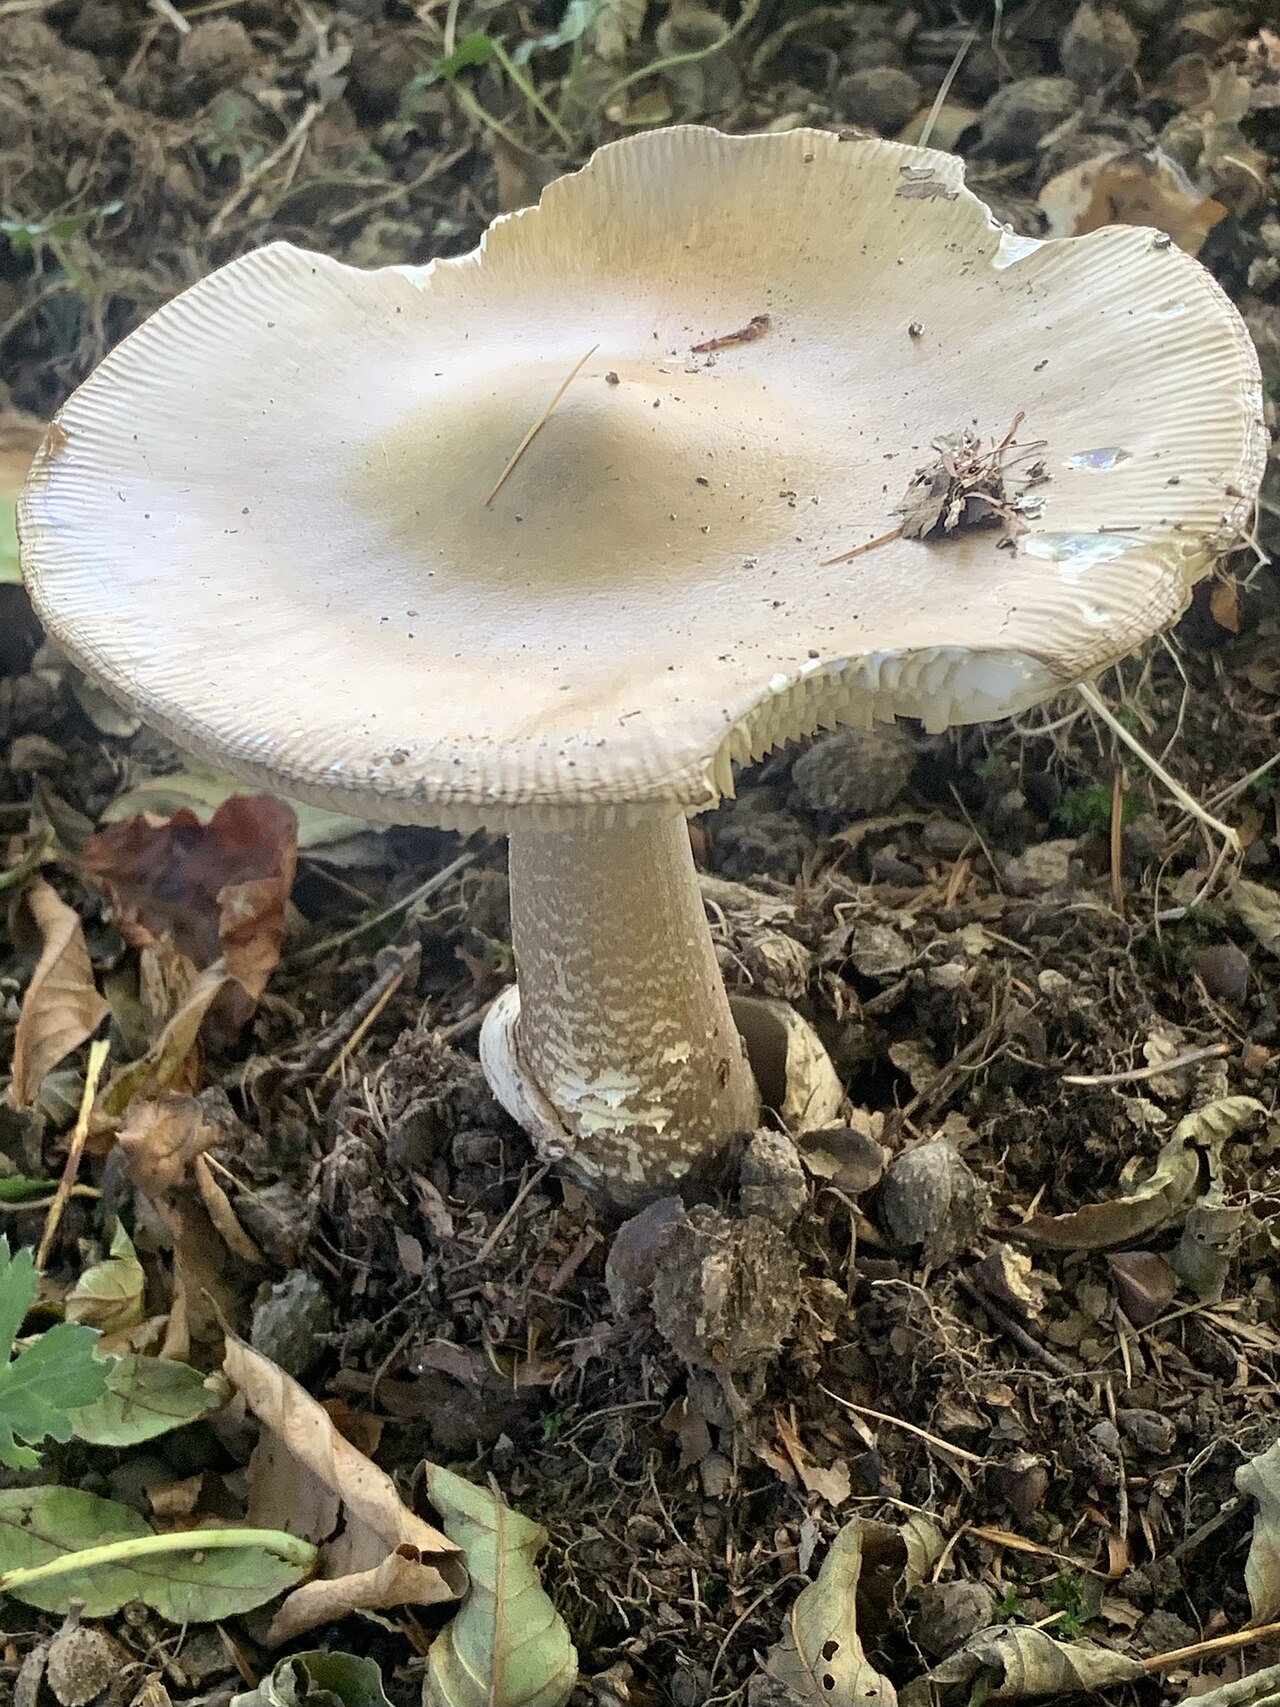
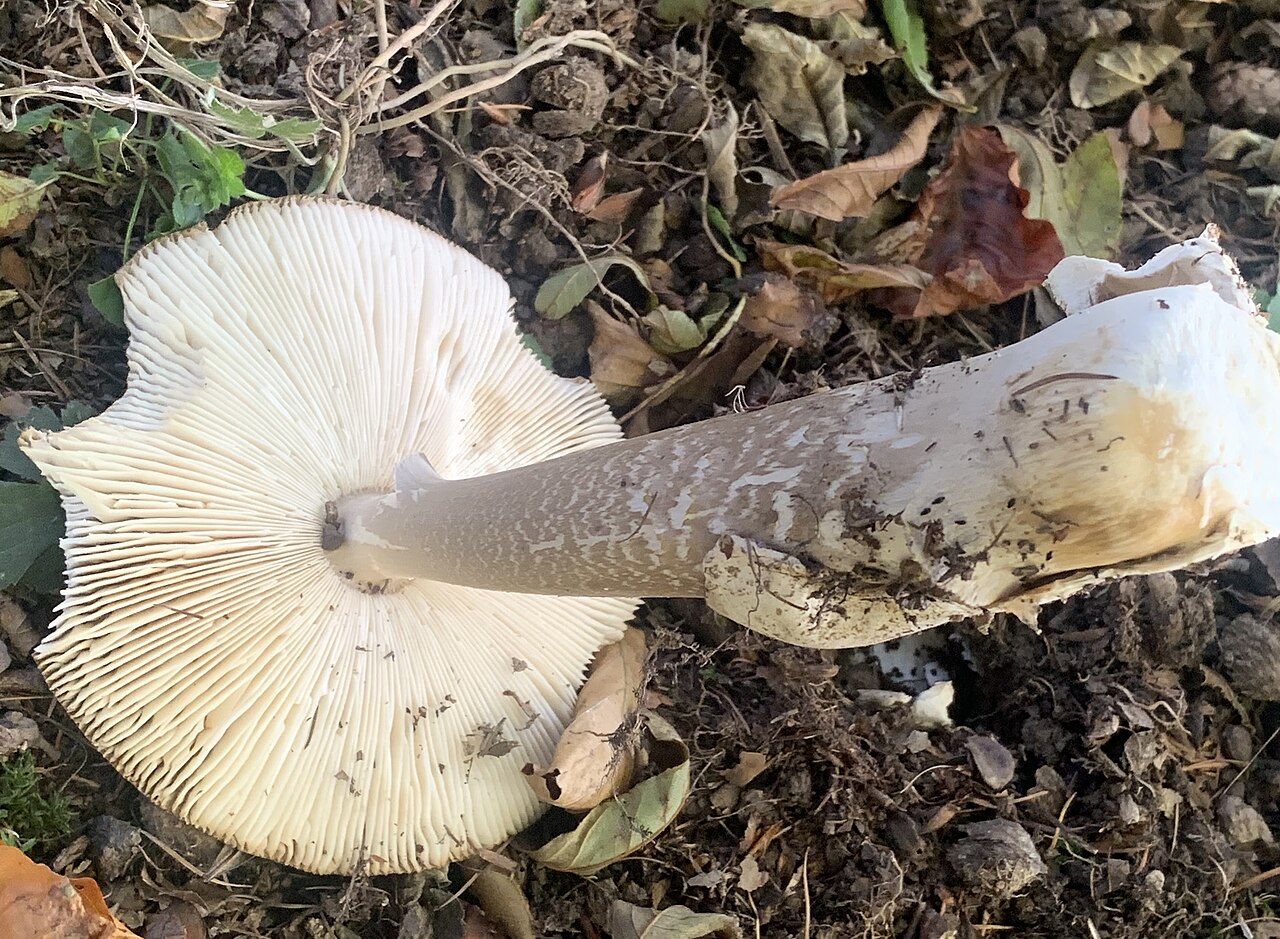
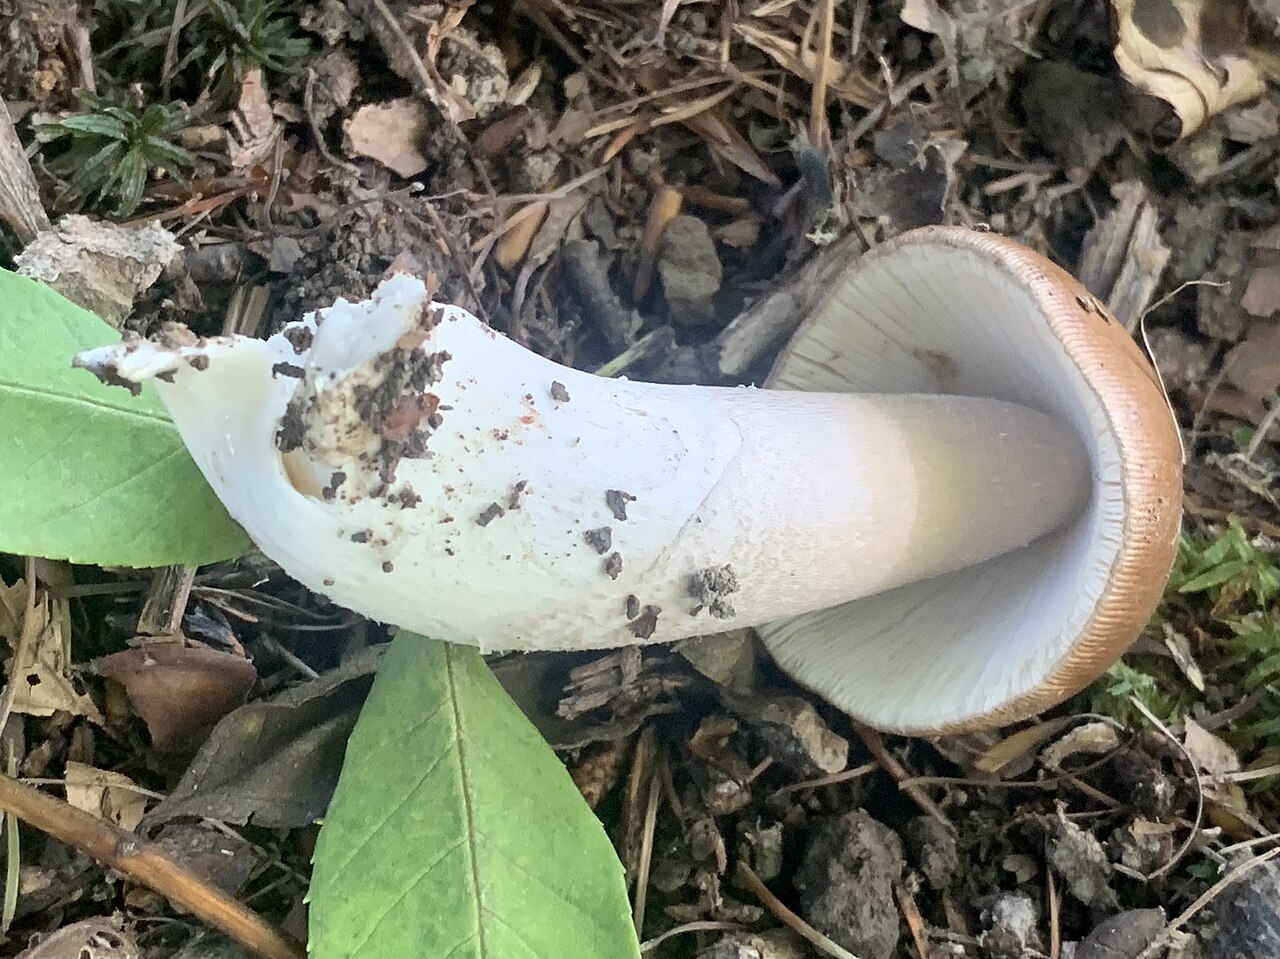
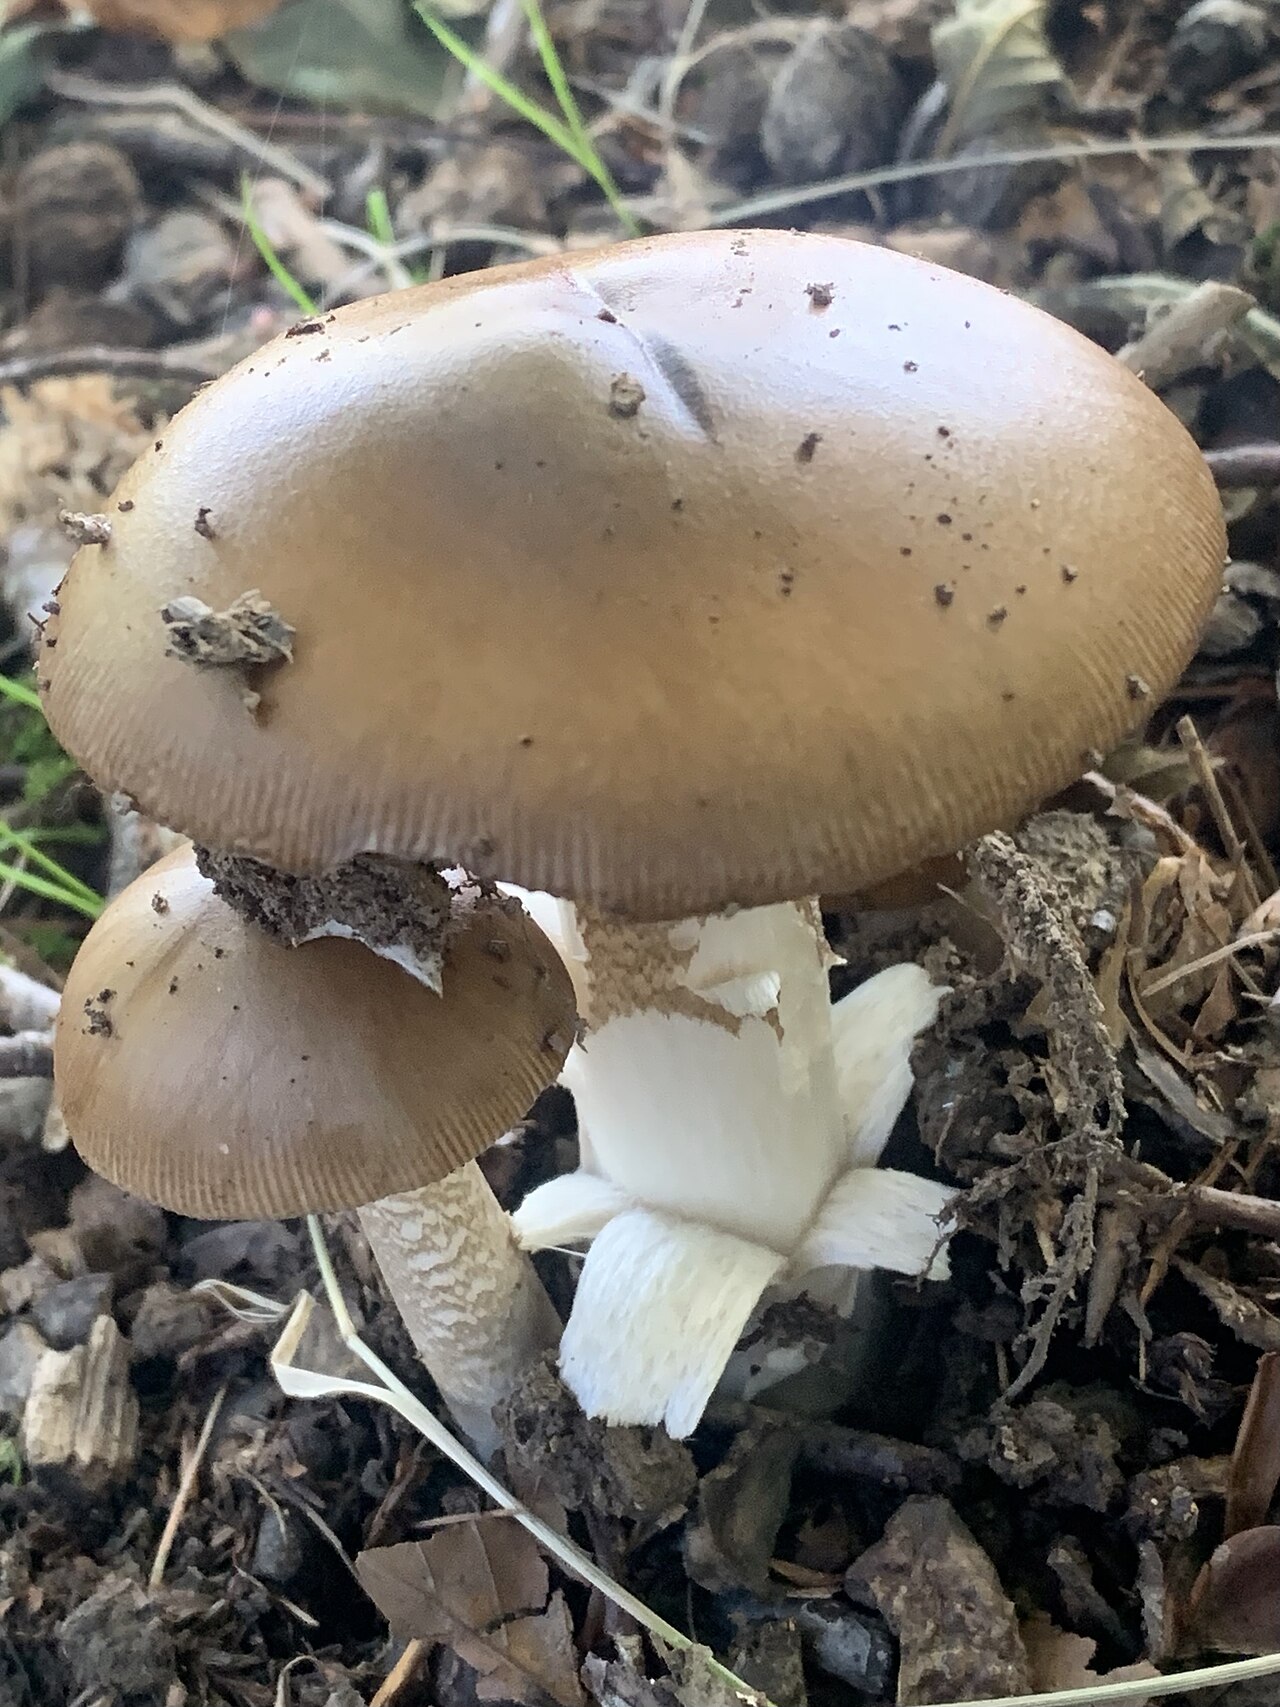
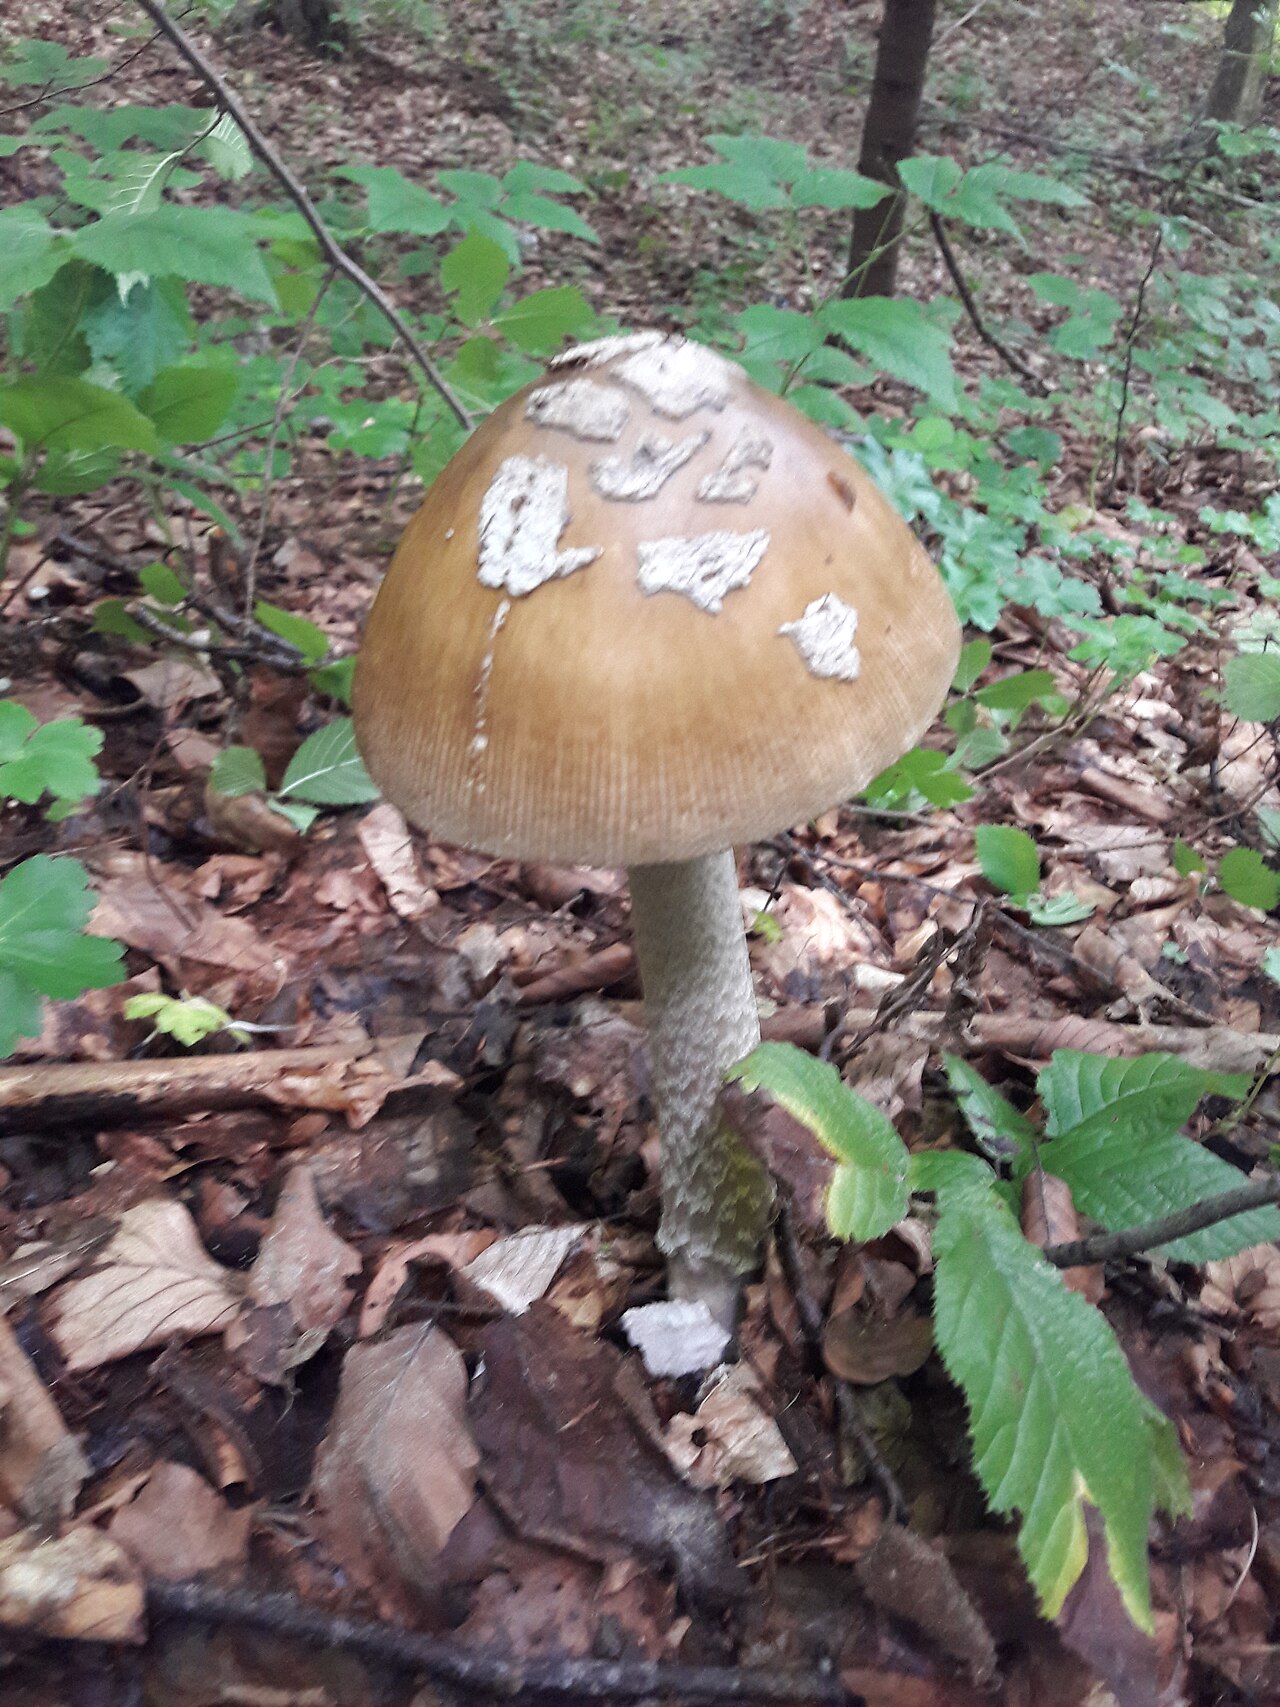
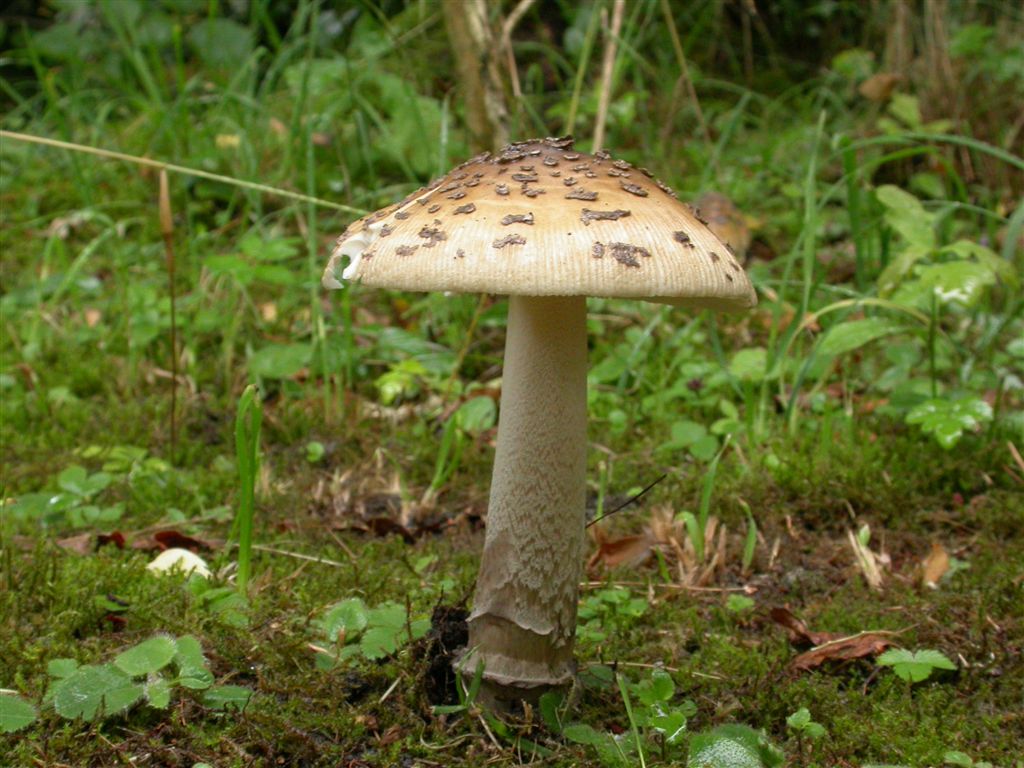
Muchomůrka Ceciliina (Amanita ceciliae) je robustní bezprstenná muchomůrka z podrodu Vaginatae. Vyznačuje se velkým žlutohnědým až tmavohnědým kloboukem s šedavými až tmavými bradavkovitými útržky plachty, výrazně rýhovaným okrajem a rozpadavou pochvou. Roste v listnatých i smíšených lesích mírného pásma.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- Tvar klobouku: vejčitý.
Tvar klobouku: plochý.
u mladých plodnic: Tvar klobouku: vejčitý.
u zralých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: zvoncovitý.
u zralých plodnic: Tvar klobouku: vyklenutý.
u zralých plodnic: Tvar klobouku: plochý.
Tvar klobouku: vyklenutý. - Lesk povrchu klobouku
- za sucha: Lesk povrchu klobouku: matný.
- Lepkavost a slizkost klobouku
- za mokra: Lepkavost a slizkost klobouku: lepkavý.
- Barva klobouku
- Barva klobouku: šedohnědý.
Barva klobouku: olivově hnědý.
Barva klobouku: červenohnědý.
Barva klobouku: žlutohnědý.
Barva klobouku: šedavý.
Barva klobouku: žlutý.
Barva klobouku: plavý.
Barva klobouku: olivový.
Barva klobouku: kaštanový. - Postavení okraje
- u starých plodnic: Postavení okraje: ohnutý vzhůru.
Postavení okraje: podvinutý. - Reliéf povrchu okraje klobouku
- Reliéf povrchu okraje klobouku: brázditý.
- Průměr klobouku
- Průměr klobouku je 50–200 mm.
- Rozsah rýhování okraje klobouku
- Rozsah rýhování okraje klobouku: 0,25 (v poměru k poloměru klobouku).
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: lupeny.
Lupeny u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: přirostlý k třeni (lupeny).
Připojení hymenoforu ke třeni: volný od třeně (lupeny).
Připojení hymenoforu ke třeni: volný od třeně (lupeny).
- Šířka přirostnutí hymenoforu
- Šířka přirostnutí hymenoforu: úzce přirostlý (lupeny).
- Celkový profil lupenu
- Celkový profil lupenu: rovnoměrně úzká (lupeny).
- Barva hymenoforu
- Barva hymenoforu: šedý.
Barva hymenoforu: bělavá.
Barva hymenoforu: krémově bílý. - Větvení lupenů
- Větvení lupenů: vidličnaté.
- Makroskopická stavba volného ostří lupenů
- Makroskopická stavba volného ostří lupenů: vroubkované a vločkovité.
- Přirozená barva ostří lupene
- Přirozená barva ostří lupene: načernalý.
- Rozestup lupenů
- Rozestup lupenů: blízko u sebe.
Rozestup lupenů: blízko u sebe.
Rozestup lupenů: hustě uspořádané. - Tloušťka lupenů
- Tloušťka lupenů: tlustý.
- Přítomnost krátkých lupenů
- Přítomnost krátkých lupenů: přítomný.
Třeň a báze
- Tvar třeně
- Tvar třeně: válcovitý.
- Barva třeně
- v horní části třeně: Barva třeně: bílý.
ve střední části třeně: Barva třeně: nahnědlý.
v dolní části třeně: Barva třeně: nahnědlý.
Barva třeně: bílý.
Barva třeně: šedohnědý. - Pokryv povrchu třeně
- Pokryv povrchu třeně: vločkatá.
Pokryv povrchu třeně: šupinatá.
v horní části třeně: Pokryv povrchu třeně: ojíněný.
v horní části třeně: Pokryv povrchu třeně: hedvábná.
v dolní části třeně: Pokryv povrchu třeně: šupinatá. - Vzor povrchu třeně
- Vzor povrchu třeně: klikatá.
- Barva ornamentace třeně
- Barva ornamentace třeně: bělavá.
- Vnitřek třeně
- Vnitřek třeně: plný.
Vnitřek třeně: dutý. - Konzistence třeně
- Konzistence třeně: křehký.
- Délka třeně
- Délka třeně: 80–250 mm.
- Průměr třeně
- Průměr třeně: 10–40 mm.
- Pochva
- Pochva: přítomný.
Prsten
- Přítomnost prstenu
- Přítomnost prstenu: bez prstenu.
Hlíza
- Přítomnost hlízy na bázi třeně
- Přítomnost hlízy na bázi třeně: nepřítomný.
Plachetka na bázi
- Stavba vela u báze třeně
- Stavba vela u báze třeně: pruhy.
Stavba vela u báze třeně: pruhy.
Stavba vela u báze třeně: vakovitá.
- Odolnost pochvy a plachetky na bázi proti poškození
- Odolnost pochvy a plachetky na bázi proti poškození: snadno se poškozuje (část vela u báze třeně: pruhy).
- Odolnost dužniny třeně proti zlomení nebo roztržení
- Odolnost dužniny třeně proti zlomení nebo roztržení: křehký.
- Barva pochvy a plachetky na bázi třeně
- Barva pochvy a plachetky na bázi třeně: bílý (část vela u báze třeně: pochva).
Dužnina
- Barva dužniny
- Barva dužniny: bílý.
- Chuť dužniny
- Chuť dužniny: sladký.
- Odolnost dužniny proti zlomení nebo roztržení
- Odolnost dužniny proti zlomení nebo roztržení: křehký.
- Vůně dužniny
- Vůně dužniny: nevýrazný (dužnina).
Vůně dužniny: slabý.
Kde a kdy roste
- Stanoviště
- Stanoviště: listnatý les.
Stanoviště: jehličnatý les.
Stanoviště: smíšený les.
Stanoviště: park.
Stanoviště: jehličnatý les, listnatý les nebo smíšený les. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: roztroušené skupiny.
Způsob růstu plodnic: v malých skupinách. - Četnost výskytu
- Četnost výskytu: nehojný.
- Doba růstu
- Plodnice se objevují od června do října.
- Oblast výskytu
- Oblast výskytu: potvrzený.
Jedlost a kuchyně
- Jedlost
- Jedlý
- Nutná úprava
- Vyžaduje úpravu
- Konzumace za syrova
- Za syrova jedovatý
Právo
- Ochrana
- V Polsku nepodléhá druhové ochraně.
- Prodej
- V Polsku není povolen k prodeji ani k výrobě houbových výrobků.
Možná záměna
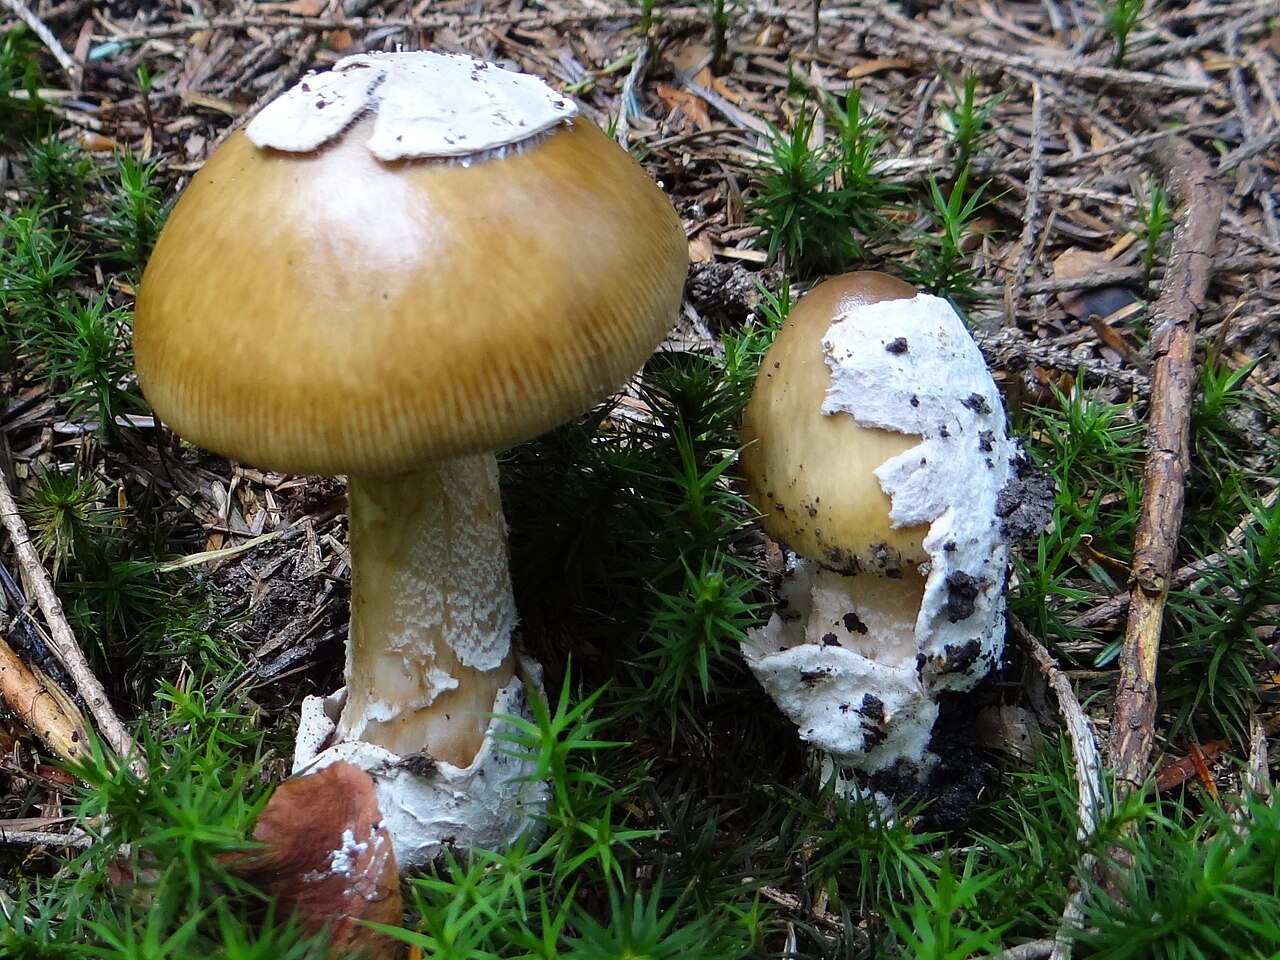
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Zdroj fotografie · CC BY-SA 3.0Amanita submembranacea
Hlavní rozdíly
Muchomůrka hnědoolivová (Amanita submembranacea) se liší přítomností velkých útržků plachetky na klobouku a zevnitř šednoucí pochvou, přičemž roste hlavně v horských lesích na kyselých půdách.
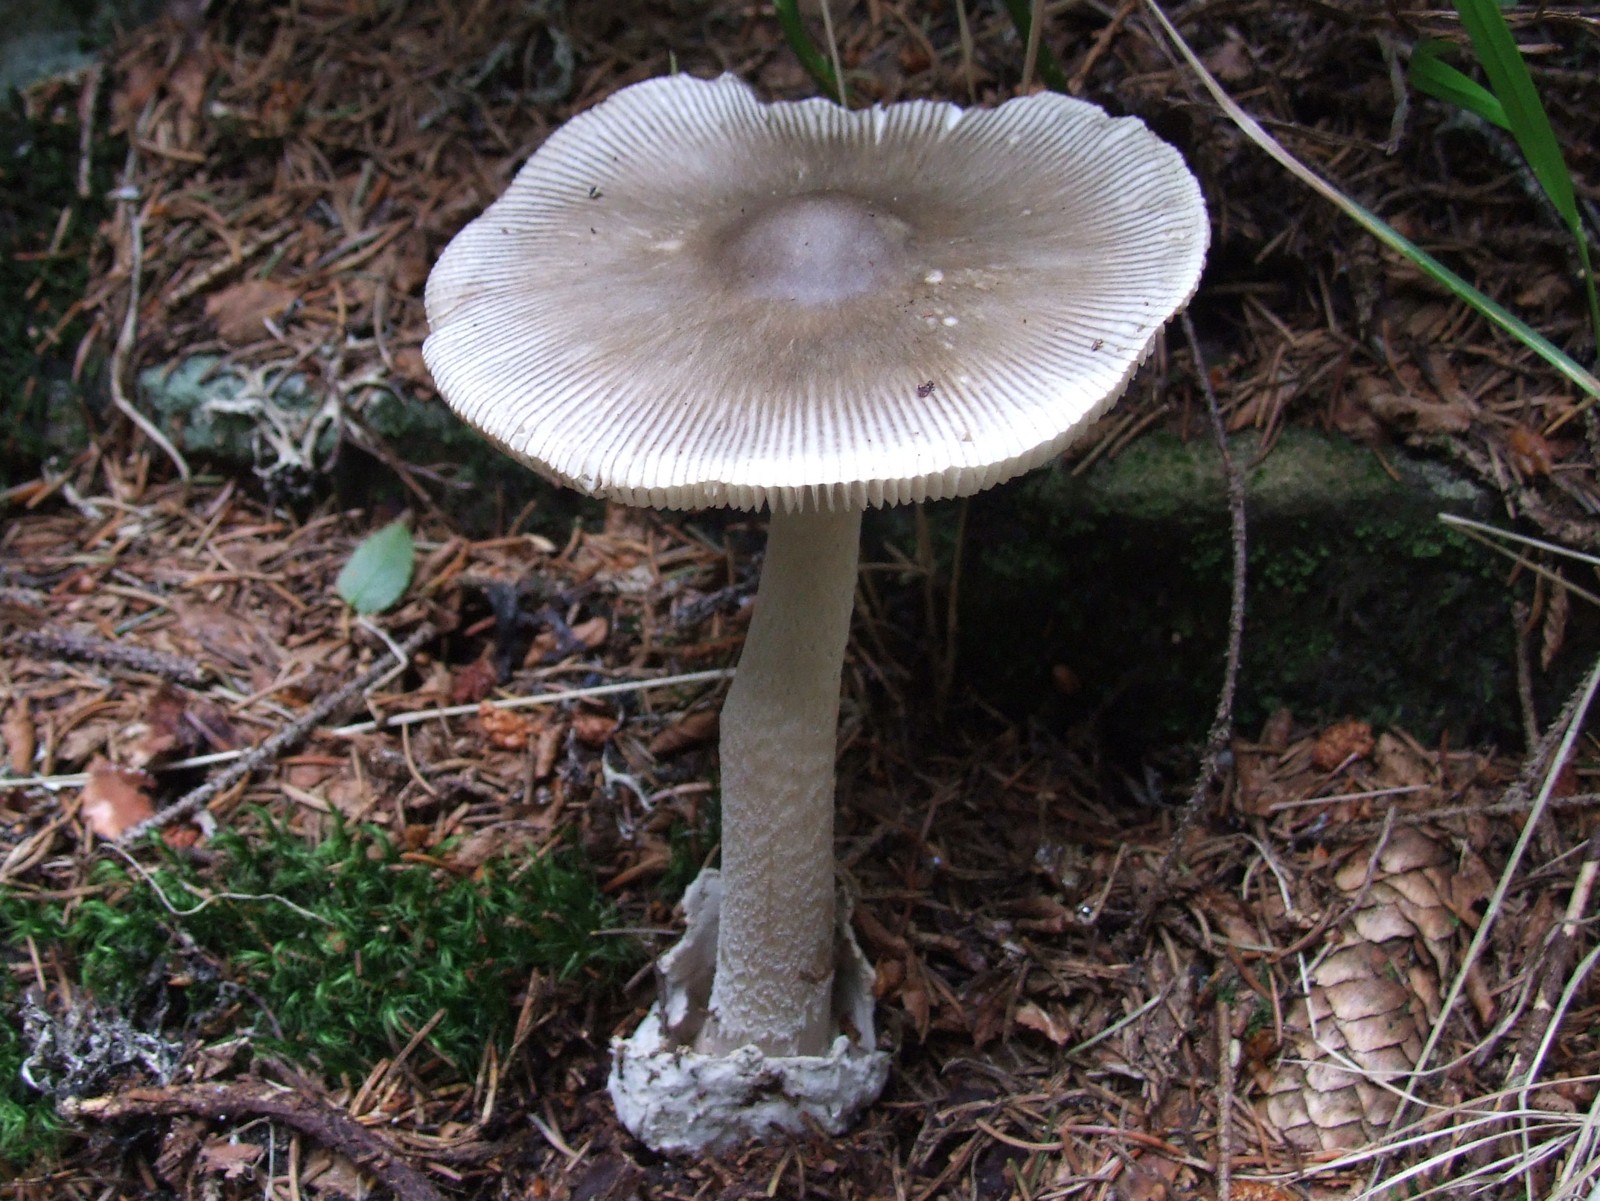
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Zdroj fotografie · CC BY-SA 4.0Amanita vaginata
Hlavní rozdíly
Muchomůrka šedivka (Amanita vaginata) se vyznačuje hladkým, bílým třeněm bez tmavých šupin a klikatého vzoru.
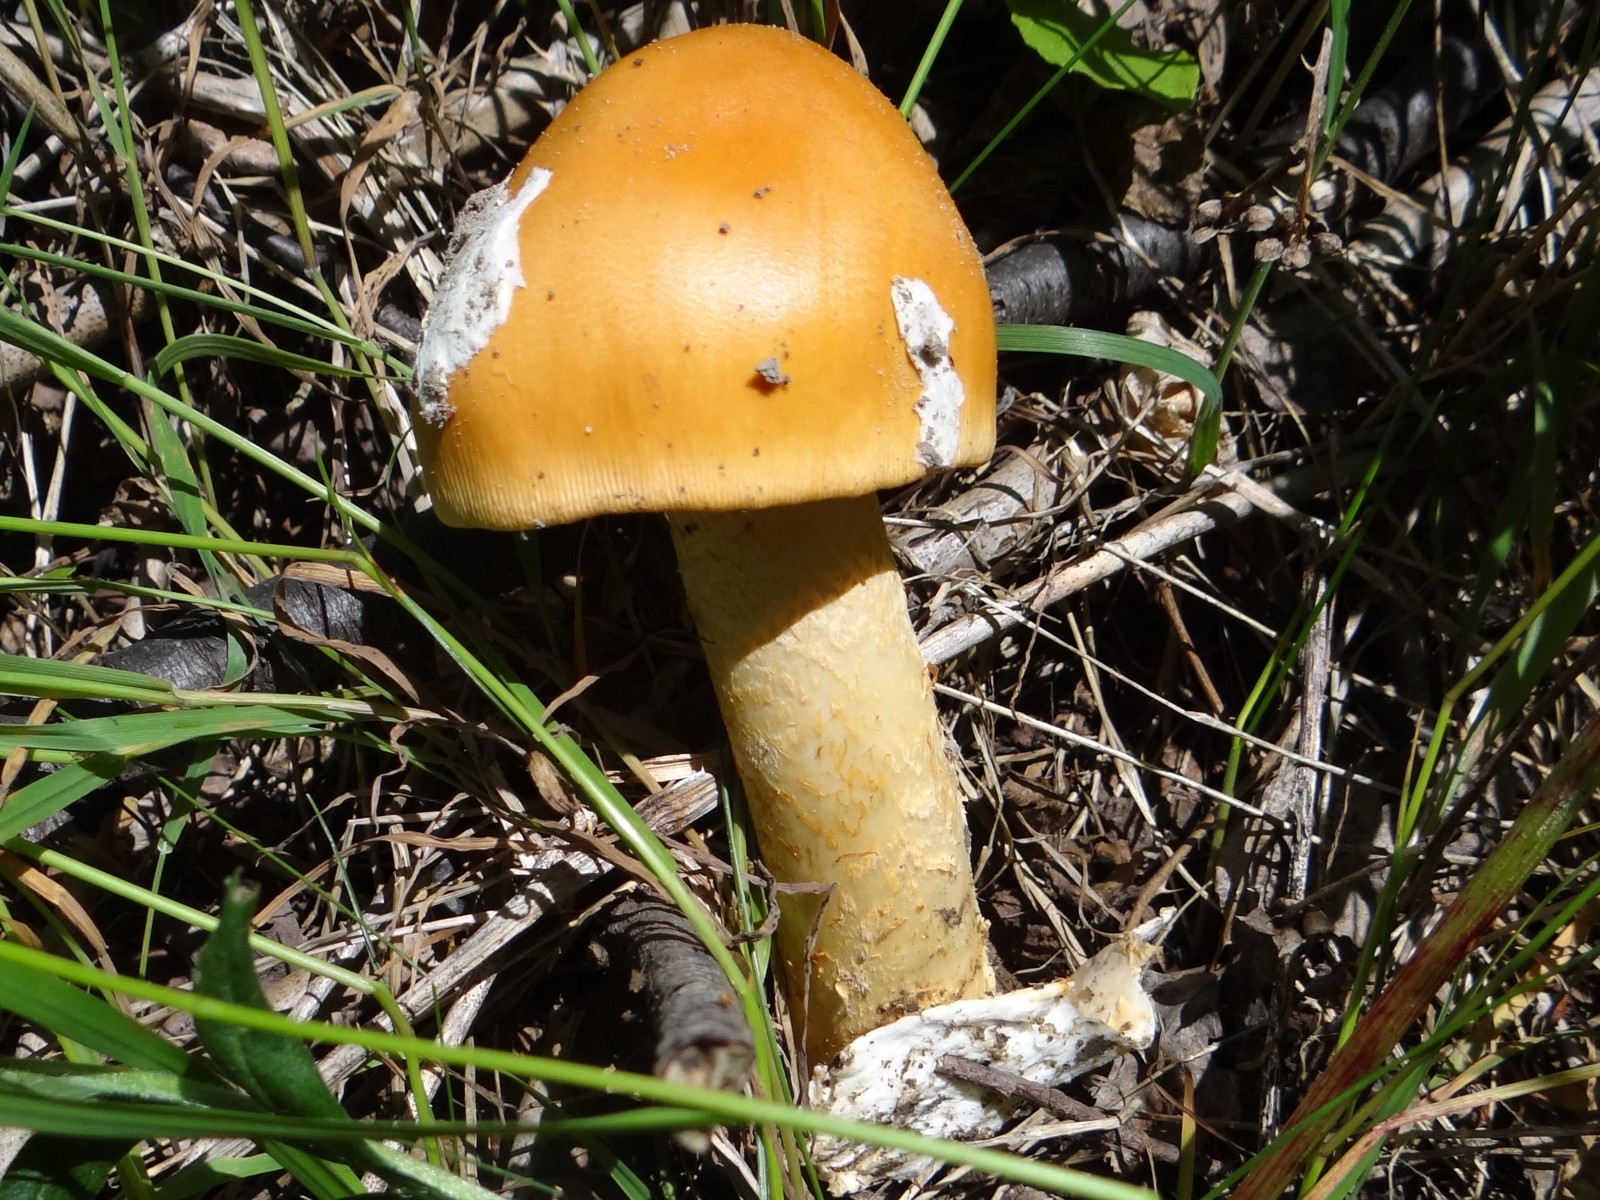
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Zdroj fotografie · CC BY-SA 4.0Amanita crocea
Hlavní rozdíly
Muchomůrka šafránová (Amanita crocea) má klobouk jasně šafránový až oranžově žlutý a pochvu uvnitř zbarvenou do oranžova.
Amanita pantherina
Hlavní rozdíly
Druh může být zaměněn se silně jedovatou muchomůrkou tygrovanou (Amanita pantherina). Muchomůrka tygrovaná má na třeni zřetelný prsten a na bázi hlízu s valy, avšak za deště nebo u starších exemplářů se může prsten setřít a odpadnout.
Amanita friabilis
Hlavní rozdíly
Amanita friabilis je podstatně menší (klobouk do 6 cm), má drobnější výtrusy a vyskytuje se výhradně pod olšemi.
Amanita fulva
Hlavní rozdíly
Muchomůrka rezavohnědá (Amanita fulva) má klobouk v liščí rezavých a plavě oranžových odstínech, hladký třeň a rezavějící pochvu.
FAQ
Na jakých místech muchomůrka Ceciliina obvykle roste?
Roste v teplých listnatých a smíšených lesích, hlavně v doubravách a bučinách na zásaditých půdách.
Se kterými dřevinami tvoří mykorhizu?
Jejími hlavními partnery jsou duby, buky a habry, zřídka také lípy.
Kdy začíná a končí její růstová sezóna?
Vyrůstá od července do října, přičemž v jižních oblastech ji lze nalézt až do konce listopadu.
Je bezpečné ochutnávat tuto houbu za syrova?
Rozhodně ne, syrová dužnina obsahuje termolabilní jedy dráždící trávicí trakt.
Jaká úprava je nutná k její bezpečné konzumaci?
Vyžaduje alespoň dvacet až pětadvacet minut nepřetržitého varu nebo dušení.
Jak chutná dužnina po řádném uvaření?
Po tepelném zpracování má příjemnou, nasládle jemnou až lehce oříškovou chuť.
Kde je její sběr k jídlu nejčastější?
Oblíbená je zejména v některých regionech jižní Evropy a ve Francii.
Podle koho získala houba své druhové jméno?
Britský mykolog Berkeley ji pojmenoval na počest své manželky Cecilie.
Byla někdy využívána k výrobě přírodních barviv?
Nikoli, dužnina neobsahuje stabilní barviva a k barvení látek se nehodí.
Jaký význam má v současné době?
Slouží především jako mykologický studijní materiál a indikátor zachovalých lesů.
Nadšenec
Názvy a historie
- Platné národní jméno
- Muchomor złotawy
- Platné vědecké jméno
- Amanita ceciliae (Berk. & Broome) Bas
- Další národní jména
- muchomůrka šupinatá, muchomůrka stroupkatá
- Další jména
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách zvedněte klobouk a prohlédněte si nános.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: bílý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: téměř kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý (téměř). Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý (téměř).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 9,5–25 µm, šířka 8,6–25 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Vápenitost půdy
- Vápenitost půdy: vápnitý.
- Listnaté stromy v okolí
- Listnaté stromy v okolí: buk.
Listnaté stromy v okolí: habr.
Listnaté stromy v okolí: dub. - Jehličnaté stromy v okolí
- Jehličnaté stromy v okolí: jedle.
- Způsob výživy
- Způsob výživy: Mykorhizní.
Mimokulinární využití
Kromě příležitostného sběru k jídlu poučenými houbaři nemá muchomůrka Ceciliina žádné doložené nekulinářské uplatnění v minulosti ani v současnosti. V etnografických sbírkách neexistují záznamy o jejím použití v domácím řemesle, magii či léčení. Její pigmenty nejsou vhodné pro barvení textilií, neboť neposkytují stálé tóny a dužnina rychle podléhá hnilobným procesům. Dnes nachází uplatnění výhradně ve vědeckém a vzdělávacím kontextu, kde slouží při mykologických exkurzích a univerzitním terénním výzkumu jako modelový příklad variability plachetek u bezprstenných druhů muchomůrek a indikátor zachovalých listnatých ekosystémů.
Historie a kultura
Tento druh popsal britský mykolog Miles Joseph Berkeley v polovině devatenáctého století a věnoval jej své manželce Cecilii, což je v mykologické nomenklatuře jeden z půvabných příkladů osobního věnování. V historické literatuře i venkovském prostředí Anglie a Francie byla tato houba zmiňována jako výrazný zástupce podzimního lesa. Pro svou nápadnou velikost a tmavé plstnaté vločky na klobouku poutala pozornost raných přírodovědců, kteří ji kreslili do kolorovaných atlasů hub devatenáctého věku. Lidová symbolika ji nespojovala s magickými úkony, spíše byla vnímána jako ušlechtilá lesní houba, která dotvářela atmosféru starých panských obor a bukových hájů.
Jedlost a bezpečnost
Plodnice jsou po důkladném povaření jedlé, avšak v syrovém či polouvařeném stavu jsou jedovaté vlivem přítomnosti termolabilních sloučenin poškozujících trávicí ústrojí. Pro bezpečnou spotřebu je nezbytná důkladná tepelná úprava v délce nejméně dvacet až pětadvacet minut, přičemž vývar se doporučuje vylít a nepoužívat. Chuť je po úpravě příjemná, jemně oříšková a dužnina je poněkud masitější než u jiných zástupců skupiny bezprstenných muchomůrek. Ve středoevropském prostoru se konzumuje jen zřídka z důvodu obecné opatrnosti houbařů, naproti tomu ve středomořských státech a některých regionech západní Evropy je ceněna jako tradiční podzimní jedlá houba místního významu.
Stanoviště a výskyt
Muchomůrka Ceciliina roste v teplejších listnatých a smíšených lesích mírného pásma, především v doubravách, bučinách a habřinách na humózních, vápnitých i neutrálních půdách. Jen zřídka se vyskytuje v čistě jehličnatých porostech, kde bývá vázána na ojedinělé vtroušené listnáče. Mykorhizní vazbu navazuje nejčastěji s dubem letním a zimním, bukem lesním, habrem obecným a občas i s lipami. Růstová sezóna začíná v červenci a pokračuje do října, přičemž hlavní vlna výskytu spadá do teplého přelomu léta a podzimu. V jižnějších oblastech Evropy se plodnice objevují až do pozdního listopadu, zatímco v chladnějších severnějších regionech je její výskyt vzácnější a striktně vázán na chráněné mikroklimatické lokality s dostatkem tepla a půdní vlhkosti.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, hodnocení autora, bez studie klinické bezpečnosti
- Konzumace za syrova
- Jedovatý
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Seznam Amanita inaurata*: jedovaté za syrova nebo nedostatečně tepelně upravené; výukový zdroj, nikoli analýza toxinu druhu
- Jedlost
- Jedovatý
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Seznam Amanita inaurata*: jedovaté za syrova nebo nedostatečně tepelně upravené; výukový zdroj, nikoli analýza toxinu druhu
- Nutná úprava
- Vyžaduje úpravu
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Vědecké názvy a taxonomie
- Platné vědecké jméno
Amanita ceciliae (Berk. & Broome) Bas
Vědecké názvy a taxonomie
Amanita ceciliae (Berk. & Broome) Bas patří do čeledi muchomůrkovitých (Amanitaceae) a sekce Vaginatae. Popsán byl v roce 1854 Berkeleym a Broomem pod basonymem Agaricus ceciliae a do rodu Amanita jej přeřadil Cornelis Bas v 80. letech 20. století.
Vědecké názvy a taxonomie
V dřívějších mykologických pracích se tento druh vyskytoval mimo jiné pod jmény Amanita inaurata, Amanitopsis inaurata a Amanitopsis ceciliae. Jméno Amanita strangulata pak mnozí autoři používali v širokém, nejednoznačném pojetí (sensu auct. mult.).
Historický rozsah jmen a pojetí druhu
V anglosaské literatuře se používá název Snakeskin Grisette a v německé Riesen-Scheidenstreifling.
Rozsah taxonu a omezení určování
Taxonomické studie ukázaly, že část severoamerických hub dříve popisovaných jako A. ceciliae nebo A. inaurata patří k samostatným druhům, jako jsou Amanita rhacopus a Amanita variicolor. Současné pojetí druhu A. ceciliae se vztahuje na evropské populace.
Rozsah taxonu a omezení určování
Ve fylogenetických studiích sekce Vaginatae byla potvrzena pozice evropského taxonu A. ceciliae (reprezentovaného mimo jiné sběry z Maďarska) pomocí analýzy sekvencí čtyř lokusů: ITS, LSU, RPB1 a TEF1-α.
- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[13] [10] [14] [3]
Ekologie a rozšíření
Laboratorní diagnostika
Strukturované údaje
Bazidie
- Délka sterigmatu bazidie
- Délka sterigmatu bazidie: do 8,4 µm. [34]
- Počet výtrusů na bazidii
- Počet výtrusů na bazidii je 4. [36]
Počet výtrusů na bazidii je 2. [36]
Počet výtrusů na bazidii je 2. [34]
Počet výtrusů na bazidii je 4. [34] - Tvar bazidie
- Tvar bazidie: kyjovitý. [36]
- Šířka sterigmatu
- Šířka sterigmatu: do 3,1 µm. [34]
- Přezky
- Přezky: nepozorováno. [36]
Ostatní laboratorní znaky
- Plodnost ostří lupenů
- Plodnost ostří lupenů: sterilní. [36]
- Měření subhymeniální zóny
- Měření subhymeniální zóny: 15–35 µm (měření wst-near). [34]
Měření subhymeniální zóny: 50–70 µm (měření wst-far). [34] - Uspořádání buněk celkové plachetky
- Uspořádání buněk celkové plachetky: koncové (na klobouku). [34]
Uspořádání buněk celkové plachetky: v krátkých řadách (na klobouku). [34]
Pokožka klobouku
- Optický vzhled hyf pokožky klobouku
- Optický vzhled hyf pokožky klobouku: hyalinní (horní vrstva pokožky klobouku). [36]
- Uspořádání hyf pokožky klobouku
- Uspořádání hyf pokožky klobouku: téměř radiální. [34]
- Tvar prvků pokožky klobouku
- Tvar prvků pokožky klobouku: válcovitý. [36]
Tvar prvků pokožky klobouku: válcovitý. [36] - Šířka prvků pokožky klobouku
- Šířka prvků pokožky klobouku: 1,1–7,7 µm. [34]
Šířka prvků pokožky klobouku: 0,8–3 µm. [36]
Šířka prvků pokožky klobouku: 2,5–4 µm. [36] - Větvení hyfy pokožky
- Větvení hyfy pokožky: větvený. [34]
- Uložení hyf pokožky v želatinózní substanci
- Uložení hyf pokožky v želatinózní substanci: přítomný. [36]
Uložení hyf pokožky v želatinózní substanci: přítomný (jen při povrchu, v povrchové vrstvě pokožky klobouku). [34]
Uložení hyf pokožky v želatinózní substanci: bez gelatinizace (ve spodní vrstvě pokožky klobouku). [34]
Uložení hyf pokožky v želatinózní substanci: přítomný (jen při povrchu, v povrchové vrstvě pokožky klobouku, u zralé plodnice). [34] - Barva pigmentu pokožky
- Barva pigmentu pokožky: hnědý. [34]
Reakce s činidly
Výtrusy
- Průměrný poměr délky a šířky výtrusu
- Průměrný poměr délky a šířky výtrusu: 1,04 (průměr). [32]
- Profil adaxiální strany bazidiospory
- Profil adaxiální strany bazidiospory: zploštělý. [34]
- Přítomnost apikulu bazidiospory
- Přítomnost apikulu bazidiospory: přítomný. [34]
- Poloha hilárního výběžku bazidiospory
- Poloha hilárního výběžku bazidiospory: téměř boční. [34]
- Tvar apikulu bazidiospory
- Tvar apikulu bazidiospory: válcovitý. [34]
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: hyalinní. [36]
Barva výtrusů pod mikroskopem: hyalinní. [34] - Délka výtrusu
- Délka výtrusu: 9,7–15,4 µm. [36]
Délka výtrusu: 10,5–14 µm. [10]
Délka výtrusu: 9,5–25 µm. [34] - Přítomnost lipidových tělísek
- Přítomnost lipidových tělísek: přítomný. [36]
- Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 0,94–1,14. [36]
Poměr délky a šířky výtrusu: 1–1,36. [34] - Tvar výtrusu
- Tvar výtrusu: kulovitý. [10]
Tvar výtrusu: kulovitý. [9]
Tvar výtrusu: téměř kulovitý. [9]
Tvar výtrusu: kulovitý. [36]
Tvar výtrusu: kulovitý (téměř). [36]
Tvar výtrusu: kulovitý. [34]
Tvar výtrusu: kulovitý (téměř). [34] - Objem výtrusu
- Objem výtrusu: 410–2030 µm³. [36]
- Tloušťka stěny výtrusu
- Tloušťka stěny výtrusu: tenkostěnný. [34]
Trama hymenoforu
Materiál a metody výzkumu
Popis znaků — zdroj a rozsah
Materiál: Atlasový popis dužniny K.Tejkala/ČMS; vůně nevýrazná.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Popis autora bez čísla zkoumaného vzorku; nevýrazná vůně nebyla ztotožněna s chemickou nepřítomností vonných látek.
Mikroskopická data — zdroj a omezení
Materiál: Průměrné Q výtrusů ze souboru 4813,100 měření autora M.Zugny; tentýž materiál jako samostatné mikroskopické vyšetření, nikoli nový experiment.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Průměr uvedený přímo autorem; nebyly odděleny nezávislé hranice délky a šířky.
Studie složení a aktivity — Akata a kol. (2012)
Materiál: Plodnice z Anatolie, označené jako Amanita ceciliae, AKATA 3037,850 m; methanolový extrakt sušeného materiálu. Test DPPH,517 nm,30 min ve tmě; tři opakování.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Výsledek in vitro, nikoli potvrzená léčba nebo bezpečná dávka potraviny. V této práci chybí molekulární ověření určení; nikoli polský materiál. Abstrakt obsahuje protichůdné přiřazení 96,16% při 4,51 mg/ml; přímo odečtený řádek udává 95,35 ± 0,10% při 4,65 mg/ml.
Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[10]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[11]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[6]- Výsledky zaznamenané v pramenech — Počet výtrusů na bazidii
- Liczba zarodników na jednej podstawce wynosi 2. [36] [34]
Liczba zarodników na jednej podstawce wynosi 4. [36] [34] - Výsledky zaznamenané v pramenech — Šířka hyfy celkové plachetky
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [34]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [36]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [36]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [34]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [34]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [34]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [34]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [34]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [36]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [36]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [36]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [36]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [36]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [36]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [36]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [36]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [36]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [36]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [36]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [36]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [34]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [34]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [34]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [10]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Názvy a hranice druhu
Polský název: Muchomor złotawy je název používaný v polském soupisu Wojewody 2003. Autor odkazuje na Borowskou a Skirgiełło v Garnweidnerovi 1993; dřívější vydání nebylo čteno. Soupis zachovává také historický Domańského název 1955 a. Šest názvů z atlasu Ekologia.pl bylo zapsáno jako alternativní s atlasovým původem. To z nich nečiní úřední názvy ani nepotvrzuje dřívější nerozhodnuté štítky záznamu.
Původní publikace: Berkeley a Broome popsali Agaricus ceciliae v roce 1854, položka 663, s. 396–397. Bas v roce 1984, s. 192, po prověření typového materiálu v Kew vytvořil kombinaci Amanita ceciliae. Rok 1984 byl vyčten ze samotné publikace; dřívější nesoulad 1983/1984 zůstává v historii. Bas oddělil chybná pozdější použití jména strangulatus od původního Friesova popisu 1838, týkajícího se jiného, nerozhodnutého druhu. Pravý Agaricus strangulatus nebyl přidán jako prosté synonymum.
Vymezení taxonu a materiál mimo Evropu: Zpracování se týká evropského pojetí Amanita ceciliae, včetně samostatně doloženého maďarského exempláře DB-2018-07-08-5/AD22. Neznamená opětovné určení všech atlasových exemplářů ani ztotožnění mexického materiálu, guatemalského aff. ceciliae nebo A. sororcula s evropským materiálem. Lambert a spoluautoři vyčlenili z dřívějších severoamerických určení A. rhacopus a A. variicolor na základě morfologie, typů a ITS. Omezení se vztahuje také na přejímání fotografií, hlášení otrav a zpráv o konzumaci.
Polský výskyt a plodení
Výskyt a měsíce: Wojewoda uvádí polské lokality mj. z okolí Elblągu, Velkopolského NP, Kampinosu, Głogowa, Dębowce, Annopolu, Babí hory, Pienin a Polesí a období červen–říjen. Jde o přehled literatury, nikoli o nový monitoring celého Polska. GRej obsahuje další, explicitně označená polská pozorování. Měsíce byly zapsány z polského soupisu; jednotlivá data sběrů nebyla přepočtena na hranice sezóny.
Biotop a opatrnost při interpretaci: Polský soupis uvádí půdu v listnatých, jehličnatých a smíšených lesích, rovněž pod smrkem. Snowarski popisuje preferenci vápnitých půd a nehojné záznamy. Přítomnost vedle stromu nebyla zaměněna za molekulární důkaz mykorhizní vazby. Historická kategorie regionálního ohrožení není současnou zákonnou ochranou v zemi. Zahraniční měsíce ani statusy z červených seznamů nenahrazují polské údaje.
Výzkum italského sběru 4813
Materiál a metoda: Sběr z 19.08.2012 pochází z bučiny u PratoRotondo, Teramo, 1460 m; sebral jej Bruno de Ruvo, určil Marino Zugna. Makropopis byl pořízen z fotografií. Suchý materiál byl rehydratován vodou nebo 5%KOH; preparáty byly pozorovány ve vodě nebo 6%amoniakální konžskéčerveni. Melzer sloužil k posouzení amyloidnosti. Bylo změřeno 100 zralých výtrusů z nehymeniálních částí, v boční projekci; zbývající typy buněk po nejméně 20krát. Žádné médium nebylo přiřazeno všem měřením společně.
Výsledky: Úplné meze výtrusů činí 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, průměrnéQ 1,04, objem 410–2030 µm³. Jsou kulovité až téměř kulovité, hyalinní, neamyloidní, s jednou velkou centrální olejovou kapkou. Bazidie mají 38,63–68,53×10,39–16,33 µm, obvykle 4, vzácně 2 výtrusy. Přezky nebyly ve zkoumaných pletivech pozorovány. Centrální rozsahy, průměry a zdrojové výhrady byly ponechány podle originálu.
Omezení: Jde o vlastní pozorování autora zpřístupněná nálezcem na blogu; dřívější verze forumAMB nebyla čtena. Exemplář nepředstavuje polské měření. Dvě vrstvy pokožky mají samostatné rozsahy šířky hyf; nebyl z nich vytvořen jeden bezpodmínečný rozsah. Absence pozorování marginálních buněk není důkazem nepřítomnosti všech cystid.
Revize evropských exsikátů
Materiál a výsledek: Tulloss uvádí 100 měření z 5 plodnic a 4 sběrů. Úplné meze výtrusů jsou 9,5–25×8,6–25 µm, při užších centrálních rozsazích 10,3–14,9×9,5–14,3 µm; zdroj výslovně zmiňuje nečetné obří výtrusy. Bazidie 65–89×13,8–19,1 µm jsou 4 sterigmatické nebo vzácně 2 sterigmatické. Nebylo uvedeno médium každého měření. Basovy poznámky o typu nebyly přeměněny v nezávislý vlastní výzkum Tullosse.
Přesné části: Trama lupenů je bilaterální. Běžné hyfy 2,8–5,9 µm byly odlišeny od cévních 2,8–23 µm. Prodloužené buňky báze subhymenia dosahují 74×16,7 µm. Samostatně popsaný sběr E.W.Brown, RET270-1, Wales, 20.09.1994, má hyfy pokožky 1,1–7,7 µm a vnitrobuněčný hnědý pigment subpellis. Tyto vlastnosti nebyly bezpodmínečně přeneseny na všechny vrstvy a sběry.
Co zůstává v dokumentaci: Sublaterální válcovitý výběžek hilu, adaxiální zploštění a tenká stěna se vztahují k bazidiospoře. Vzácný široce elipsoidní tvar vyžaduje chybějící kvalifikátor frekvence. Rozsah želatinizace, tloušťky vrstev, různé tvary a stěny buněk plachetky si zachovávají samostatné kontexty; nebyly nahrazeny libovolným stupněm „silný“.
Molekulární data a zdrojový materiál
Evropa: Varga a kol. (2024), tabulka 1, uvádějí vlastní maďarský vzorek DB-2018-07-08-5(AD22) ze Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 a TEF1α PP273683. Francouzský JMM20180914, ITS MN490692, odkazuje na Hansse a Moreaua 2020; dánský JV05-394, ITS UDB002315, je označen jako nepublikovaný. Řádky nepředstavují tři nezávislá vyšetření téhož polského vzorku. Správné bibliografické údaje práce jsou Mycological Progress 23, článek 38; nikoli 63.
Írán: Práce Resources of Iranian agarics(2022) uvádí pro A. ceciliae ITS OK299150 a LSU OK299170. V tabulce antioxidačního potenciálu stojí u tohoto druhu ND. Tato tabulka nebyla považována za nové stanovení aktivity extraktu ani nebyly íránské výsledky dosazeny do polské sezóny. Sekvence představují identifikátory uvedené autory; neproběhlo zde vlastní stažení a opětovné zarovnání sekvencí.
Jedlost a doklady škodlivosti
Hodnocení a jejich podklad: ČMS hodnotí druh jako jedlý s nízkou kulinářskou hodnotou. Výukový materiál SFMU řadí název Amanita inaurata mezi houby jedovaté za syrova nebo nedostatečně tepelně upravené a hvězdičkou označuje hemolyziny. Tento záznam neobsahuje specifickou analýzu toxinu zkoumaného vzorku, individuální sérii pacientů ani validovaný čas a teplotu úpravy. Hodnocení autorů jsou zaznamenána s jejich podmínkami; nejsou výsledkem klinické studie.
Hlášení z Montany: Registr NAMA uvádí jeden dospělý případ označený Amanita inaurata, Montana, začátek 0,6 h, gastrointestinální příznaky, pocení, nystagmus a rozmazané vidění. Přehled nedokazuje totožnost s evropským A. ceciliae ani pro tento řádek nepředkládá úplné individuální kauzální šetření. Hlášení nebylo opomenuto, ale nebyla z něj vyvozena toxicita správně určeného polského materiálu.
Omezení přehledu: V prověřených zdrojích nebyla získána primární, pro evropský druh specifická analýza hemolyzinů ani úplná klinická série rozhodující o bezpečnosti. To není důkaz neexistence takových studií. Nebyly doplněny amatoxiny, muscimol ani záruka detoxikace.
Složení a experiment s extraktem
Materiál a metody: Akata a kol. (2012) zkoumali anatolské plodnice označené jako A. ceciliae, AKATA 3037,850 m. Extrakt sušeného materiálu byl připraven metanolem. Byl proveden test DPPH s odečtem 517 nm po 30 min ve tmě, tři opakování. Bílkoviny byly stanoveny Kjeldahlovou metodou, koeficient 6,25. Nebyla uvedena DNA verifikace určení.
Odečet tabulek: Řádek tabulky 2 uvádí 4,65 mg/ml extraktu, výtěžnost 23,2% a RSA 95,35 ± 0,10%. Abstrakt spojuje název druhu s 96,16% a 4,51 mg/ml, zatímco tabulka a popis výsledků spojují tato druhá čísla s Armillaria mellea. Zaznamenán byl odečtený řádek včetně rozporu. Tabulka 3: popel 10,75%, tuk 5,91%, vlhkost 9,34%, bílkoviny 31,20%, sacharidy 42,81%; nespecifikuje zvlášť normalizaci na sušinu nebo čerstvou hmotnost.
Význam: Jde o chemickou aktivitu in vitro, nikoli o prokázanou léčbu, potravní dávku ani technologické uplatnění. Výsledek aktivity a koncentrace se týkají téhož experimentu, ačkoli typy záznamů modelu jsou oddělené. Chybějící kvantitativní parametry a neuvedený základ složení byly ponechány pro rozšíření modelu.
Hledání dalších využití a sled odkazů
Rozsah rešerše: Byla prověřena léčebná, bylinářská, technická, barvířská, kořenicí, kulturní a biotechnologická využití pod jmény ceciliae a inaurata. Zjištěné primární zdroje potvrzují zkoumání extraktu a taxonomii; neprokazují zavedení do praxe, léčbu člověka ani výrobu léčiva. Tradiční užití nebylo vyloučeno pouhou absencí studií.
Nerozřešené stopy: Vyhledávání ukázalo pákistánský přehled Sultany a Qureshiho 2007 označující název ceciliae jako medicinal. Úplný zdroj nebyl získán: server vrátil chybu 500. Z úryvku tabulky nebyl vyvozen účel použití, dávka ani totožnost evropského druhu. Zprávy označené aff.ceciliae z Guatemaly a starší mexické názvy rovněž nebyly automaticky ztotožněny s evropským druhem. Přesné dotazy a stavy jsou zachovány v dokumentaci.
Doplnění po rozšíření společného modelu
Sterygmata a subhymenium: V souhrnném evropském popisu Tullosse dosahuje šířka sterygmatu 3,1 mikrometru. Dolní hranice není uvedena. Subhymeniální zóna byla měřena odděleně v bodech wst-near (15–35 mikrometrů) a wst-far (50–70 mikrometrů). Jde o dvě různá měření ze zdroje; nebyl z nich vytvořen rozsah 15–70 mikrometrů. Počet vrstev zůstává samostatnou informací vyžadující rozšíření modelu.
Pokožka klobouku — oddělené sběry: Pokožka sběru E. W. Browna má tloušťku 155–220 mikrometrů a pokožka dospělého exempláře Perreau 475 má 65–95 mikrometrů. Tento druhý exemplář byl před usušením ponechán na výstavě. Sběry nebyly směšovány ani nebyla tloušťka celé pokožky připsána jejím jednotlivým vrstvám. U obou autor popisuje gel při samotném povrchu a u Browna zjevně nezeželatinizovaný subpellis a subradiální uspořádání běžných hyf. Hyalinnost u sběru Zugny se týká výhradně pokryvu ixocutis, nikoli pigmentované vrstvy cutis.
Buňky vela: V popisu vela na klobouku uvádí Tulloss mj. kulovité a elipsoidní buňky a jejich koncové umístění a krátké řetízky. Záznam těchto částí informace nenahrazuje chybějící výrazy „téměř“, hruškovitý tvar, podíl buněk vůči hyfám ani samostatný počet do tří buněk v řetízku. Velum na bázi třeně u sběru Zugny si zachovává svůj samostatný rozsah.
Ověření výskytu — rozsah a omezení
Materiál: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Rozsah záznamu: Dokumentované pozorování.
Datum přezkumu: 19.10.2026.
Omezení: Jde o přehled publikovaných určení; nebylo provedeno nové určení materiálu ani genotypizace.
Ověření výskytu — rozsah a omezení
Materiál: Udokumentowany zbiór z województwa podkarpackiego.
Rozsah rešerše: Fragmenty zdrojů.
Přečten byl fragment zdroje; úplný text a metody nebyly ověřeny.
Datum revize: 21.10.2026.
Omezení: Původní určení a rozsah pojmu byly zachovány. Nebylo deklarováno nové zkoumání položek ani prostudování všech publikací citovaných zdrojem.
Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje vyúčtování.
Právní základ a rozsah hodnocení
Analytické výsledky
Složení a laboratorní aktivita
- Aktivita zkoumaného extraktu
- Aktivita zkoumaného extraktu: antioxidační aktivita (extrakt, aktivita zjištěna, methanolový extrakt z plodnic AKATA3037). [32]
- Expoziční koncentrace zkoumaného materiálu
- Expoziční koncentrace zkoumaného materiálu: 4,65 mg/ml (DPPH, extrakt, methanolový extrakt z plodnic AKATA3037, uvedená hodnota). [32]
Nejdůležitější látky a jejich účinky
Nejdůležitější látky a jejich účinky
V laboratorních studiích prováděných na methanolových extraktech z vysušených plodnic bylo analyzováno chemické složení a antioxidační vlastnosti pletiv.
Nejdůležitější látky a jejich účinky
Extrakty z plodnic vykázaly schopnost neutralizace volných radikálů v testu DPPH.
Nejdůležitější látky a jejich účinky
Extrakty z plodnic vykázaly v laboratorních podmínkách antioxidační aktivitu na úrovni 95,35 ± 0,10% při koncentraci extraktu 4,65 mg/ml.
Nejdůležitější látky a jejich účinky
Biochemická analýza sušiny prokázala obsah 31,20% bílkovin, 42,81% sacharidů, 5,91% tuku a 10,75% popela při zbytkové vlhkosti 9,34%.
Nejdůležitější látky a jejich účinky
Antioxidační aktivita extraktů zkoumaná v laboratorních podmínkách nepředstavuje potvrzení léčivých vlastností po požití houby.
Nejdůležitější látky a jejich účinky
Studie genetických sekvencí v rámci sekce Vaginatae potvrzují odlišnost evropských vývojových linií muchomůrky zlatavé.
Stanoviště a výskyt
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Podkarpatské vojvodství | VI–X |
|
Zdroje
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (také [22])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (také [19])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (také [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (také [23])
- Marek Snowarski/GRej, Amanita ceciliae (také [24])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- Muchomor złotawy — czytelny opis materiału i źródłowe wyniki
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015