
Съедобный

Требует кулинарной обработки

В сыром виде ядовит

Укажите местоположение, чтобы увидеть данные для своего региона.
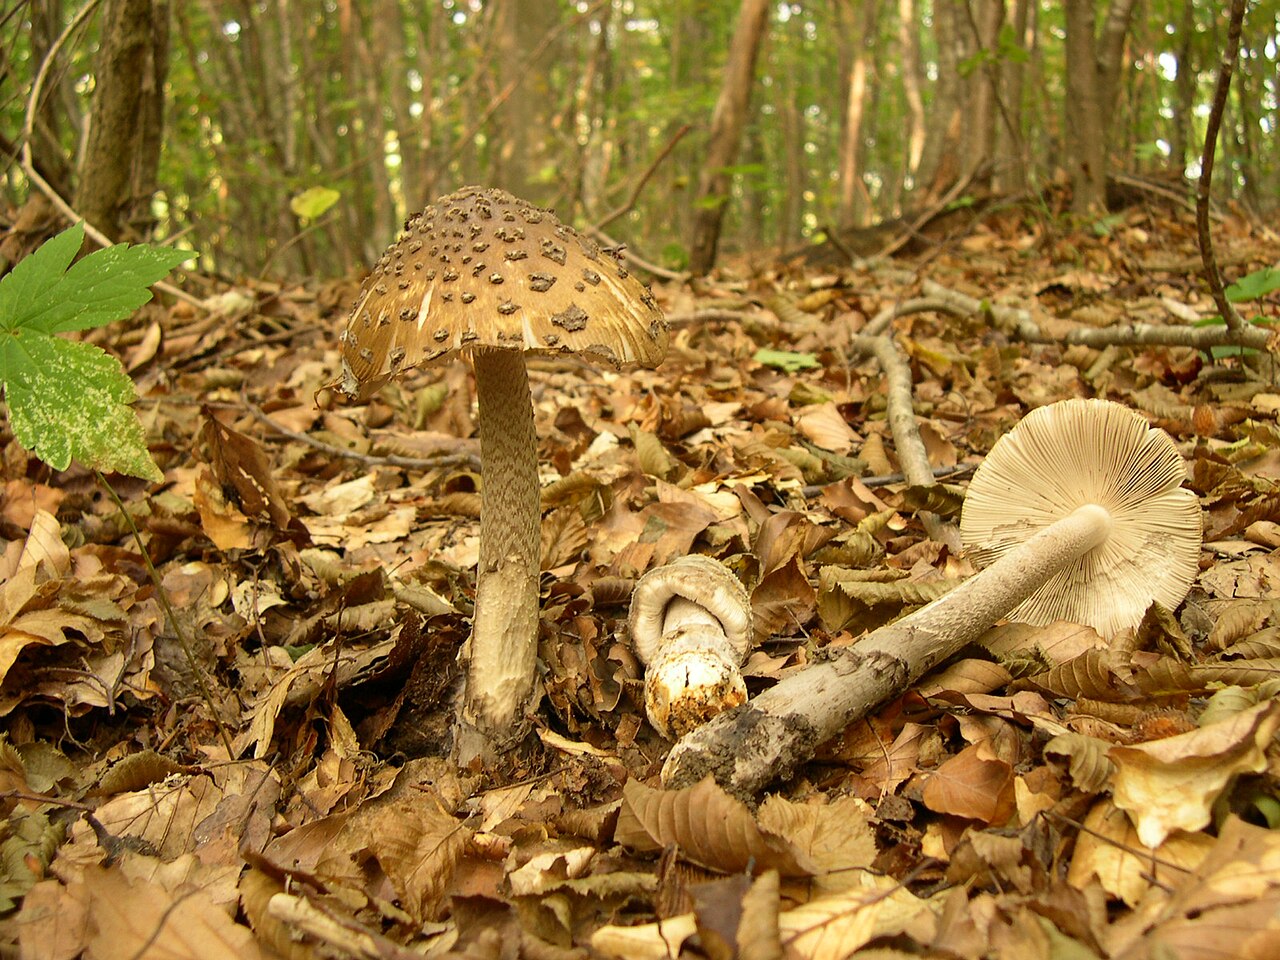
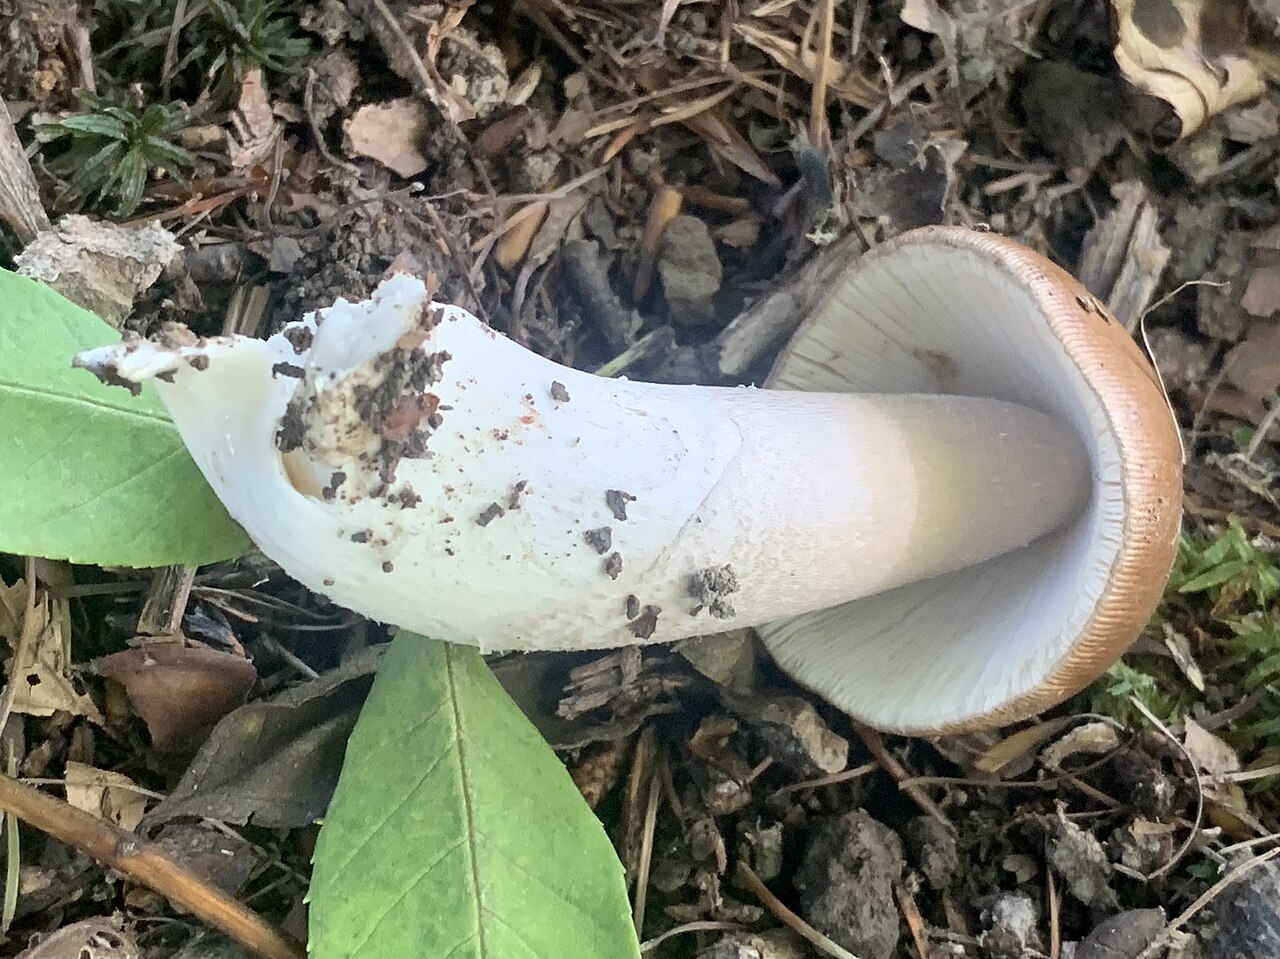
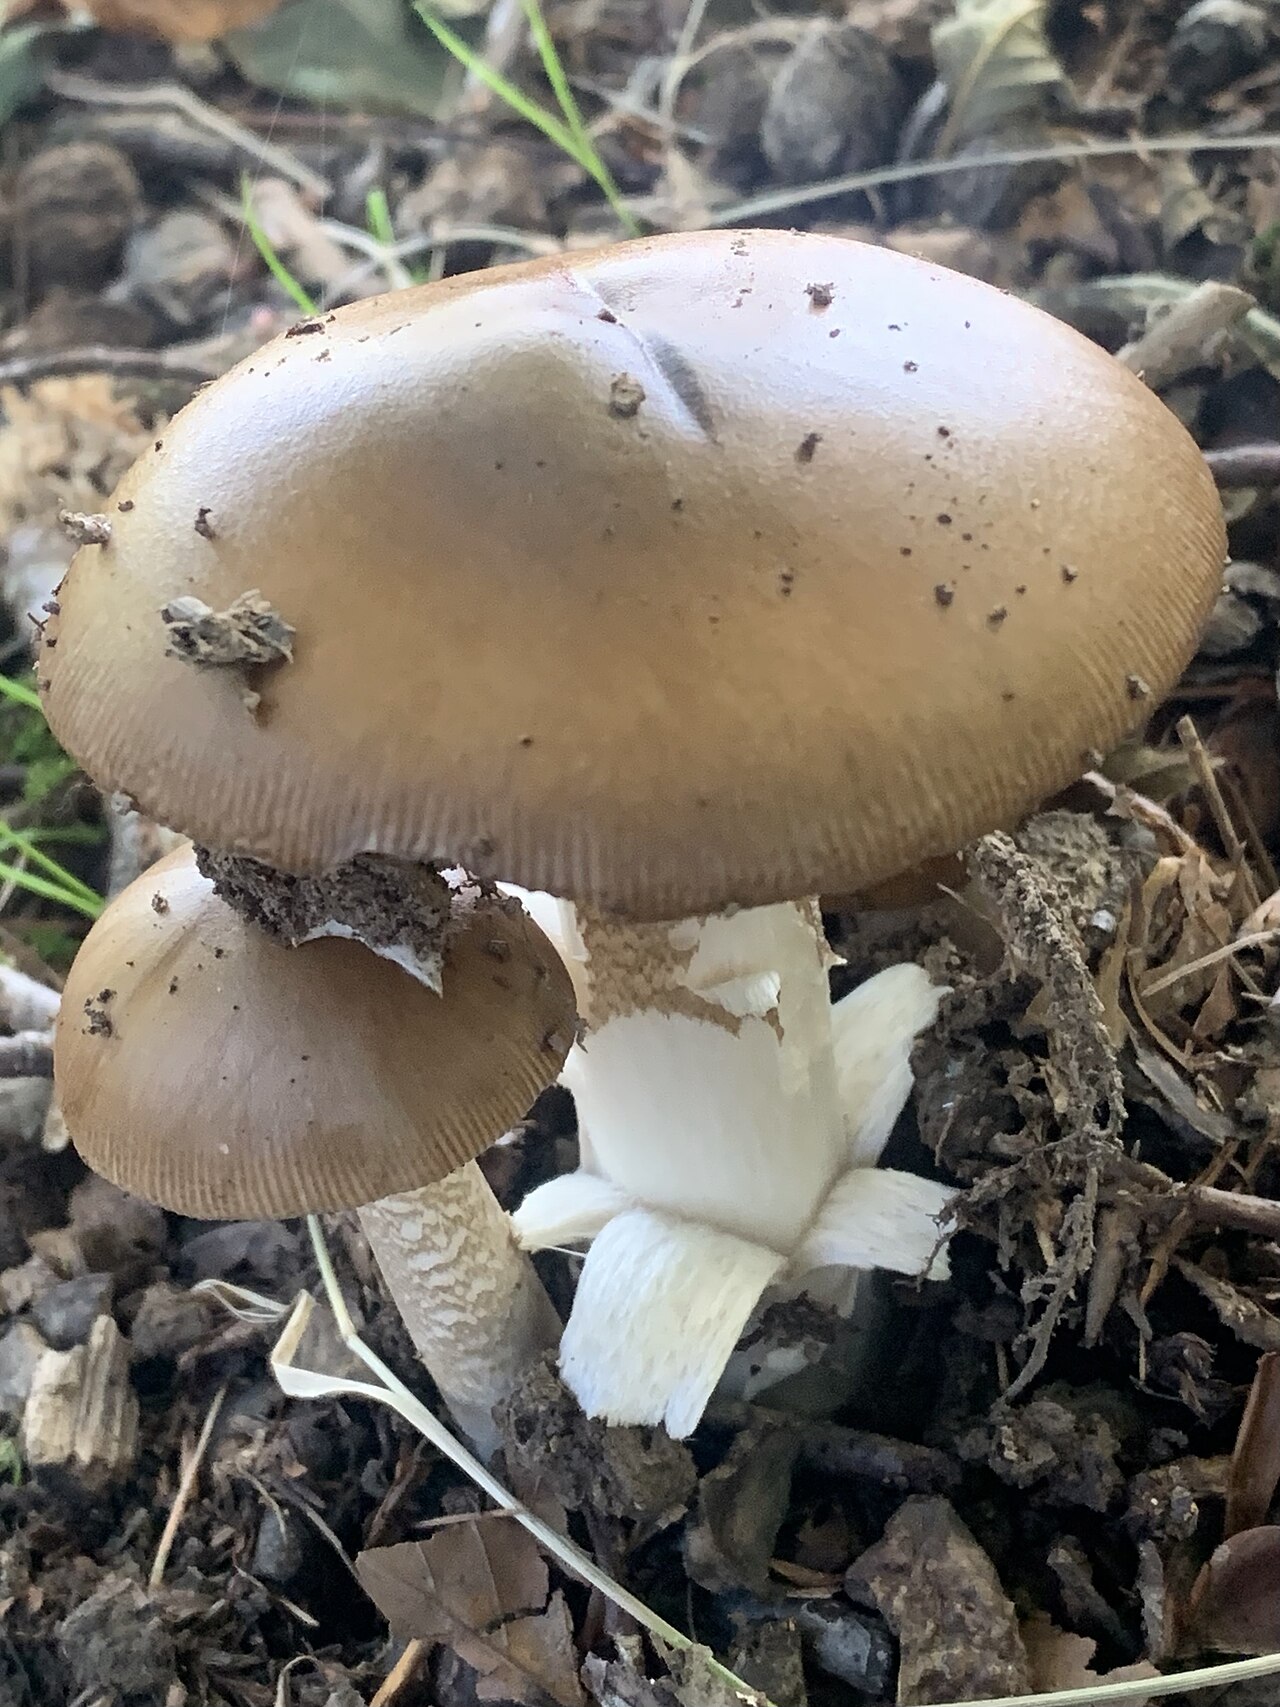
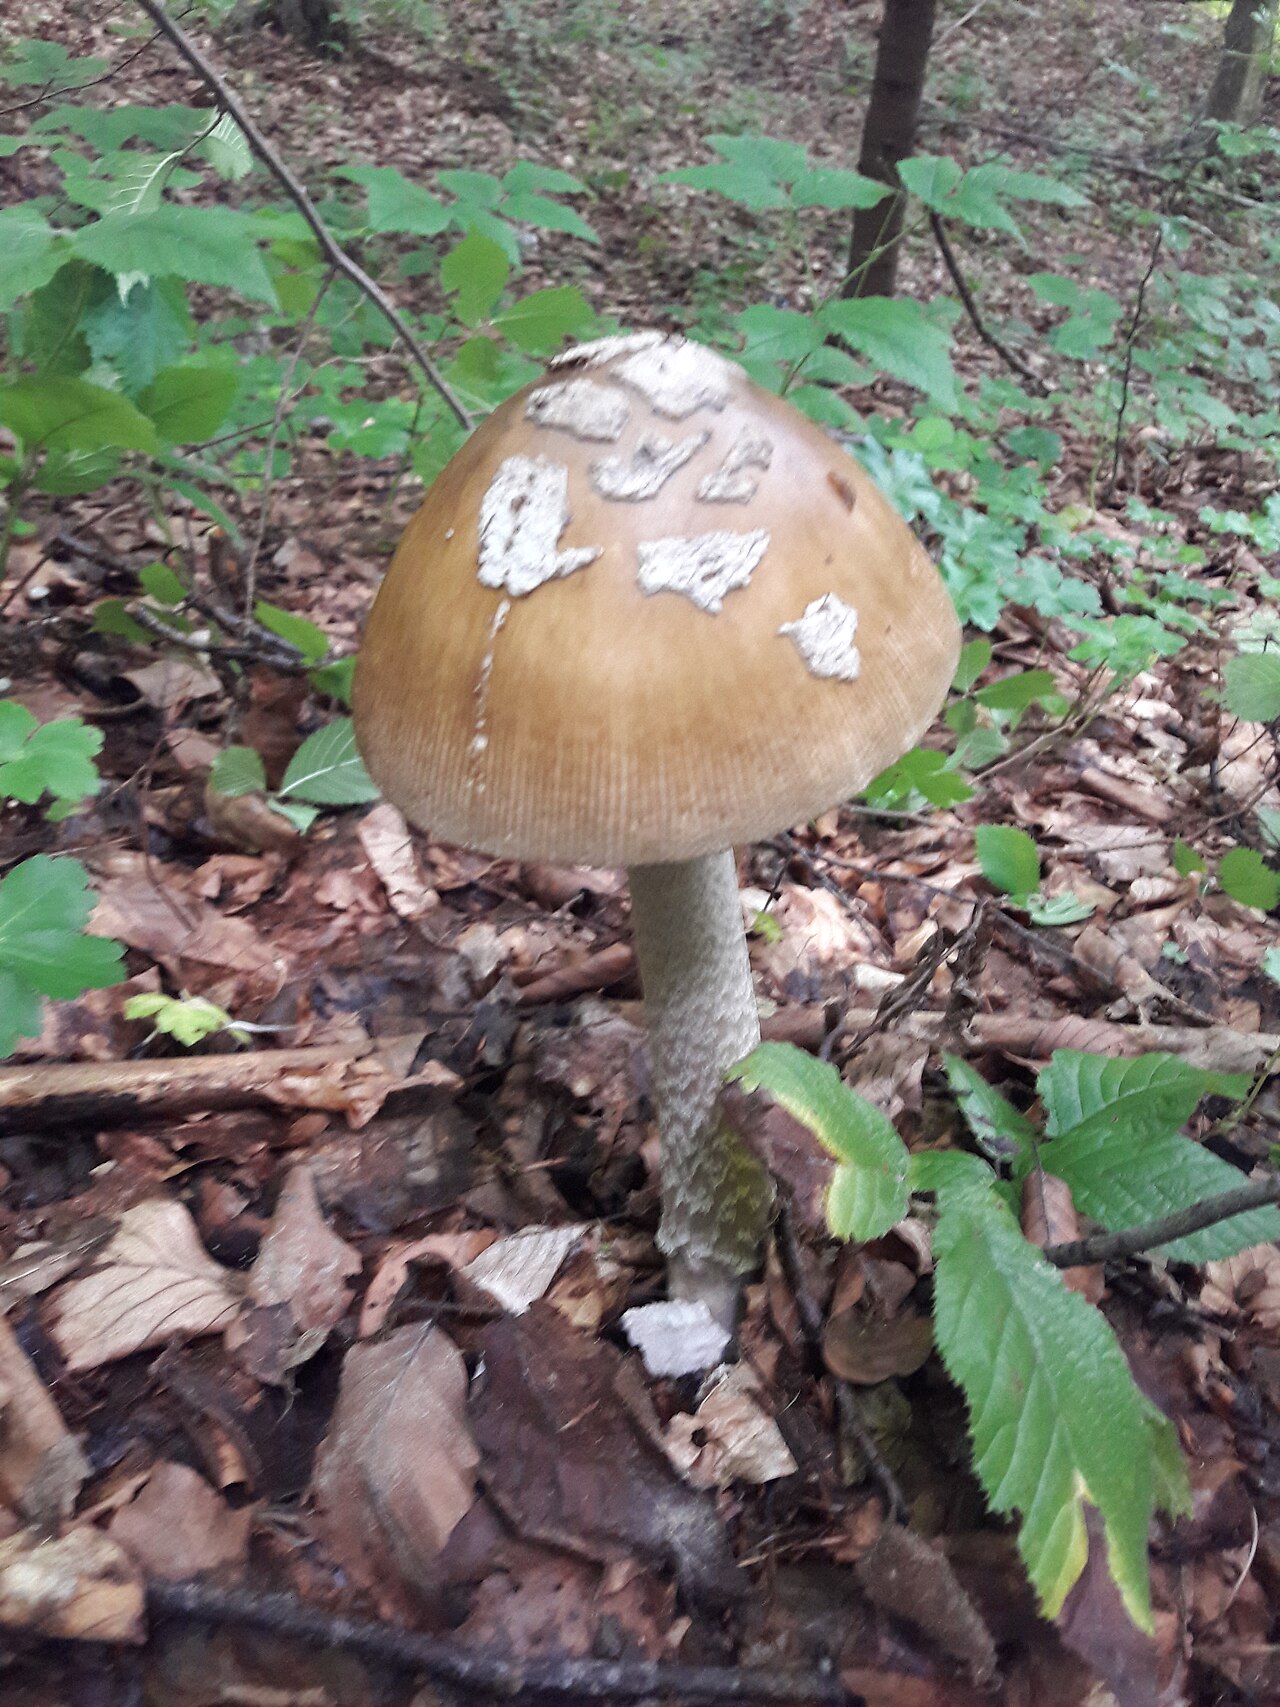
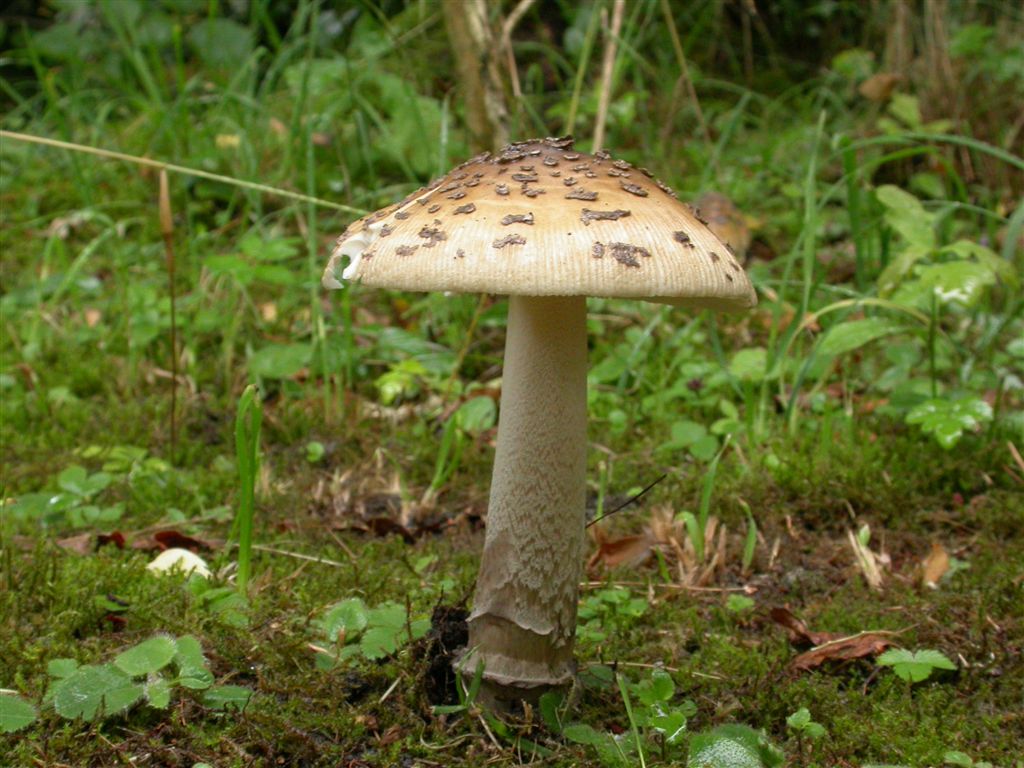
Amanita ceciliae (поплавок странный, мухомор Сесилии) — крупный базидиальный гриб из рода мухоморов (Amanita). Характеризуется массивной шляпкой желто-коричневого или орехового тона с крупными серыми хлопьевидными остатками покрывала и бороздчатым краем. Ножка высокая, плотная, без кольца, с хрупкой фрагментированной вольвой. Образует микоризу преимущественно с лиственными породами деревьев. Является условно-съедобным видом, требующим непременного отваривания перед употреблением.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
Шляпка
- Форма шляпки
- Форма шляпки: яйцевидный.
Форма шляпки: плоский.
у молодых плодовых тел: Форма шляпки: яйцевидный.
у зрелых плодовых тел: Форма шляпки: полушаровидный.
у зрелых плодовых тел: Форма шляпки: колокольчатый.
у зрелых плодовых тел: Форма шляпки: выпуклый.
у зрелых плодовых тел: Форма шляпки: плоский.
Форма шляпки: выпуклый. - Блеск поверхности шляпки
- в сухом состоянии: Блеск поверхности шляпки: матовый.
- Клейкость и слизистость шляпки
- во влажном состоянии: Клейкость и слизистость шляпки: липкий.
- Цвет шляпки
- Цвет шляпки: серо-коричневый.
Цвет шляпки: Оливково-коричневый.
Цвет шляпки: красно-коричневый.
Цвет шляпки: жёлто-коричневой.
Цвет шляпки: сероватый.
Цвет шляпки: Жёлтый.
Цвет шляпки: палевый.
Цвет шляпки: оливковой.
Цвет шляпки: каштановый. - Положение края
- у старых плодовых тел: Положение края: отогнутый кверху.
Положение края: завёрнутый внутрь. - Рельеф поверхности края шляпки
- Рельеф поверхности края шляпки: бороздчатый.
- Диаметр шляпки
- Диаметр шляпки составляет 50–200 mm.
- Протяженность рубчатости края шляпки
- Протяженность рубчатости края шляпки: 0,25 (относительно радиуса шляпки).
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: пластинки.
Пластинки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: приросший к ножке (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
- Ширина прирастания гименофора
- Ширина прирастания гименофора: узко приросший (пластинки).
- Общий профиль пластинки
- Общий профиль пластинки: равномерно узкая (пластинки).
- Цвет гименофора
- Цвет гименофора: серый.
Цвет гименофора: беловатая.
Цвет гименофора: кремово-белый. - Разветвление пластинок
- Разветвление пластинок: раздвоенные.
- Макроскопическое строение свободного края пластинок
- Макроскопическое строение свободного края пластинок: городчатый и хлопьевидное.
- Естественный цвет края пластинки
- Естественный цвет края пластинки: черноватый.
- Расстояние между пластинками
- Расстояние между пластинками: близко расположенные.
Расстояние между пластинками: близко расположенные.
Расстояние между пластинками: густо расположенные. - Толщина пластинок
- Толщина пластинок: толстый.
- Наличие коротких пластиночек
- Наличие коротких пластиночек: присутствует.
Ножка и основание
- Форма ножки
- Форма ножки: цилиндрический.
- Цвет ножки
- в верхней части ножки: Цвет ножки: белый.
в средней части ножки: Цвет ножки: коричневатый.
в нижней части ножки: Цвет ножки: коричневатый.
Цвет ножки: белый.
Цвет ножки: серо-коричневый. - Покров поверхности ножки
- Покров поверхности ножки: хлопьевидная.
Покров поверхности ножки: чешуйчатая.
в верхней части ножки: Покров поверхности ножки: мучнистый.
в верхней части ножки: Покров поверхности ножки: шелковистая.
в нижней части ножки: Покров поверхности ножки: чешуйчатая. - Узор поверхности ножки
- Узор поверхности ножки: зигзагообразный.
- Цвет орнаментации ножки
- Цвет орнаментации ножки: беловатая.
- Внутреннее строение ножки
- Внутреннее строение ножки: сплошной.
Внутреннее строение ножки: полый. - Консистенция ножки
- Консистенция ножки: ломкий.
- Длина ножки
- Длина ножки: 80–250 mm.
- Диаметр ножки
- Диаметр ножки: 10–40 mm.
- Вольва
- Вольва: присутствует.
Кольцо
- Наличие кольца
- Наличие кольца: без кольца.
Клубень
- Наличие клубня у основания ножки
- Наличие клубня у основания ножки: отсутствует.
Покрывало у основания
- Строение покрывала у основания ножки
- Строение покрывала у основания ножки: полосы.
Строение покрывала у основания ножки: полосы.
Строение покрывала у основания ножки: мешковидная.
- Устойчивость вольвы и покрывала в основании к повреждению
- Устойчивость вольвы и покрывала в основании к повреждению: легко повреждается (элемент покрывала у основания ножки: полосы).
- Устойчивость мякоти ножки к излому или разрыву
- Устойчивость мякоти ножки к излому или разрыву: ломкий.
- Окраска вольвы и покрывала у основания ножки
- Окраска вольвы и покрывала у основания ножки: белый (элемент покрывала у основания ножки: вольва).
Мякоть
- Цвет мякоти
- Цвет мякоти: белый.
- Вкус мякоти
- Вкус мякоти: сладкий.
- Устойчивость мякоти к излому или разрыву
- Устойчивость мякоти к излому или разрыву: ломкий.
- Запах мякоти
- Запах мякоти: невыразительный (мякоть).
Запах мякоти: слабый.
Где и когда растёт
- Местообитание
- Местообитание: лиственный лес.
Местообитание: хвойный лес.
Местообитание: смешанный лес.
Местообитание: парк.
Местообитание: хвойный лес, лиственный лес или смешанный лес. - Субстрат
- Субстрат: почва.
- Характер роста плодовых тел
- Характер роста плодовых тел: одиночно.
Характер роста плодовых тел: рассеянные группы.
Характер роста плодовых тел: небольшими группами. - Частота встречаемости
- Частота встречаемости: нечастый.
- Период плодоношения
- Плодовые тела появляются с июня по октябрь.
- Ареал распространения
- Ареал распространения: подтверждено.
Съедобность и кулинария
- Съедобность
- Съедобный
- Требуемая кулинарная обработка
- Требует кулинарной обработки
- Употребление в сыром виде
- В сыром виде ядовит
Законодательство
- Охрана
- В Польше вид не подлежит видовой охране.
- Торговля
- В Польше вид не допущен к торговле или производству грибной продукции.
С чем можно спутать
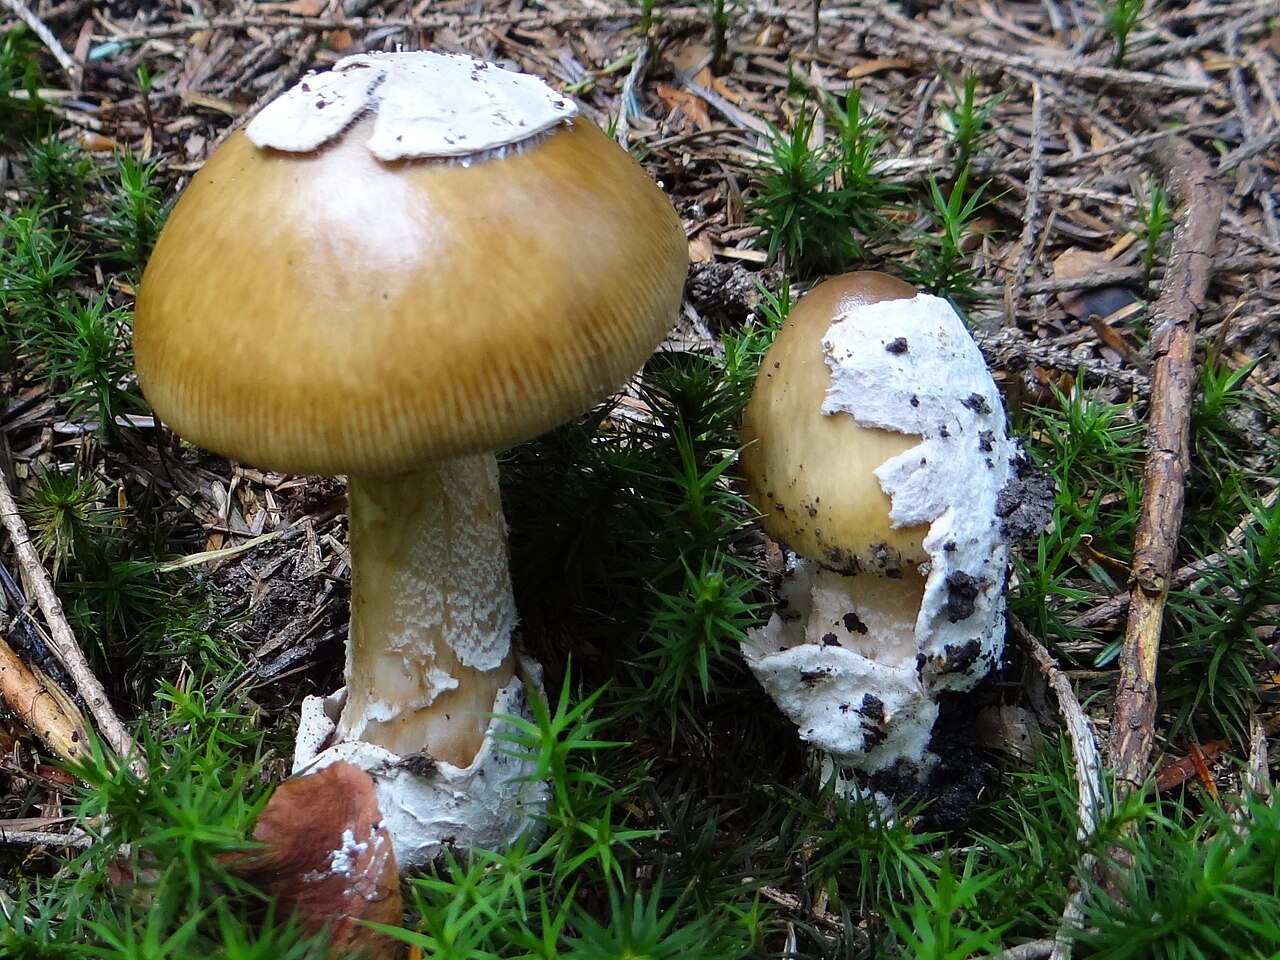
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Источник фотографии · CC BY-SA 3.0Amanita submembranacea
Важнейшие отличия
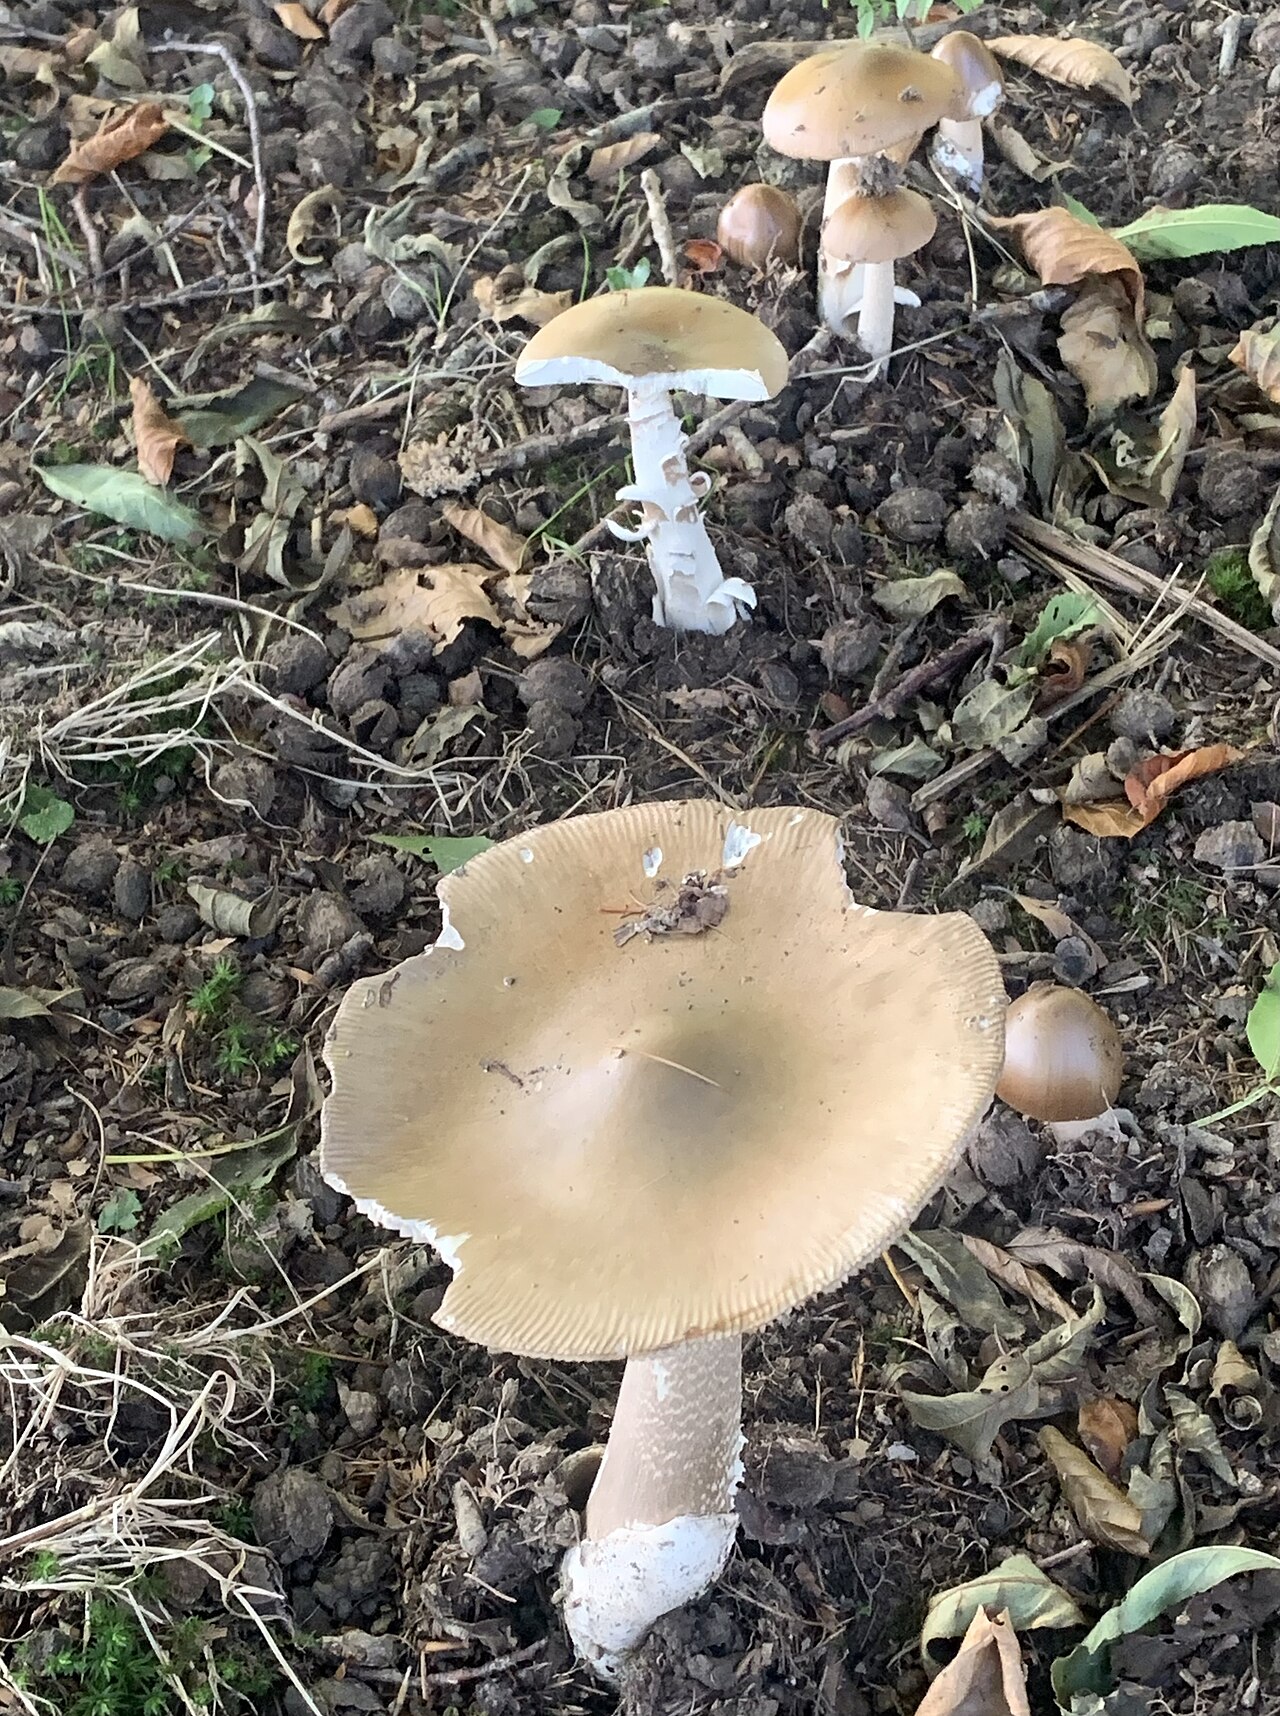
Мухомор коричнево-оливковый (Amanita submembranacea) отличается наличием крупных фрагментов покрывала на шляпке и сереющей изнутри вольвой, произрастая преимущественно в горных лесах на кислых почвах.
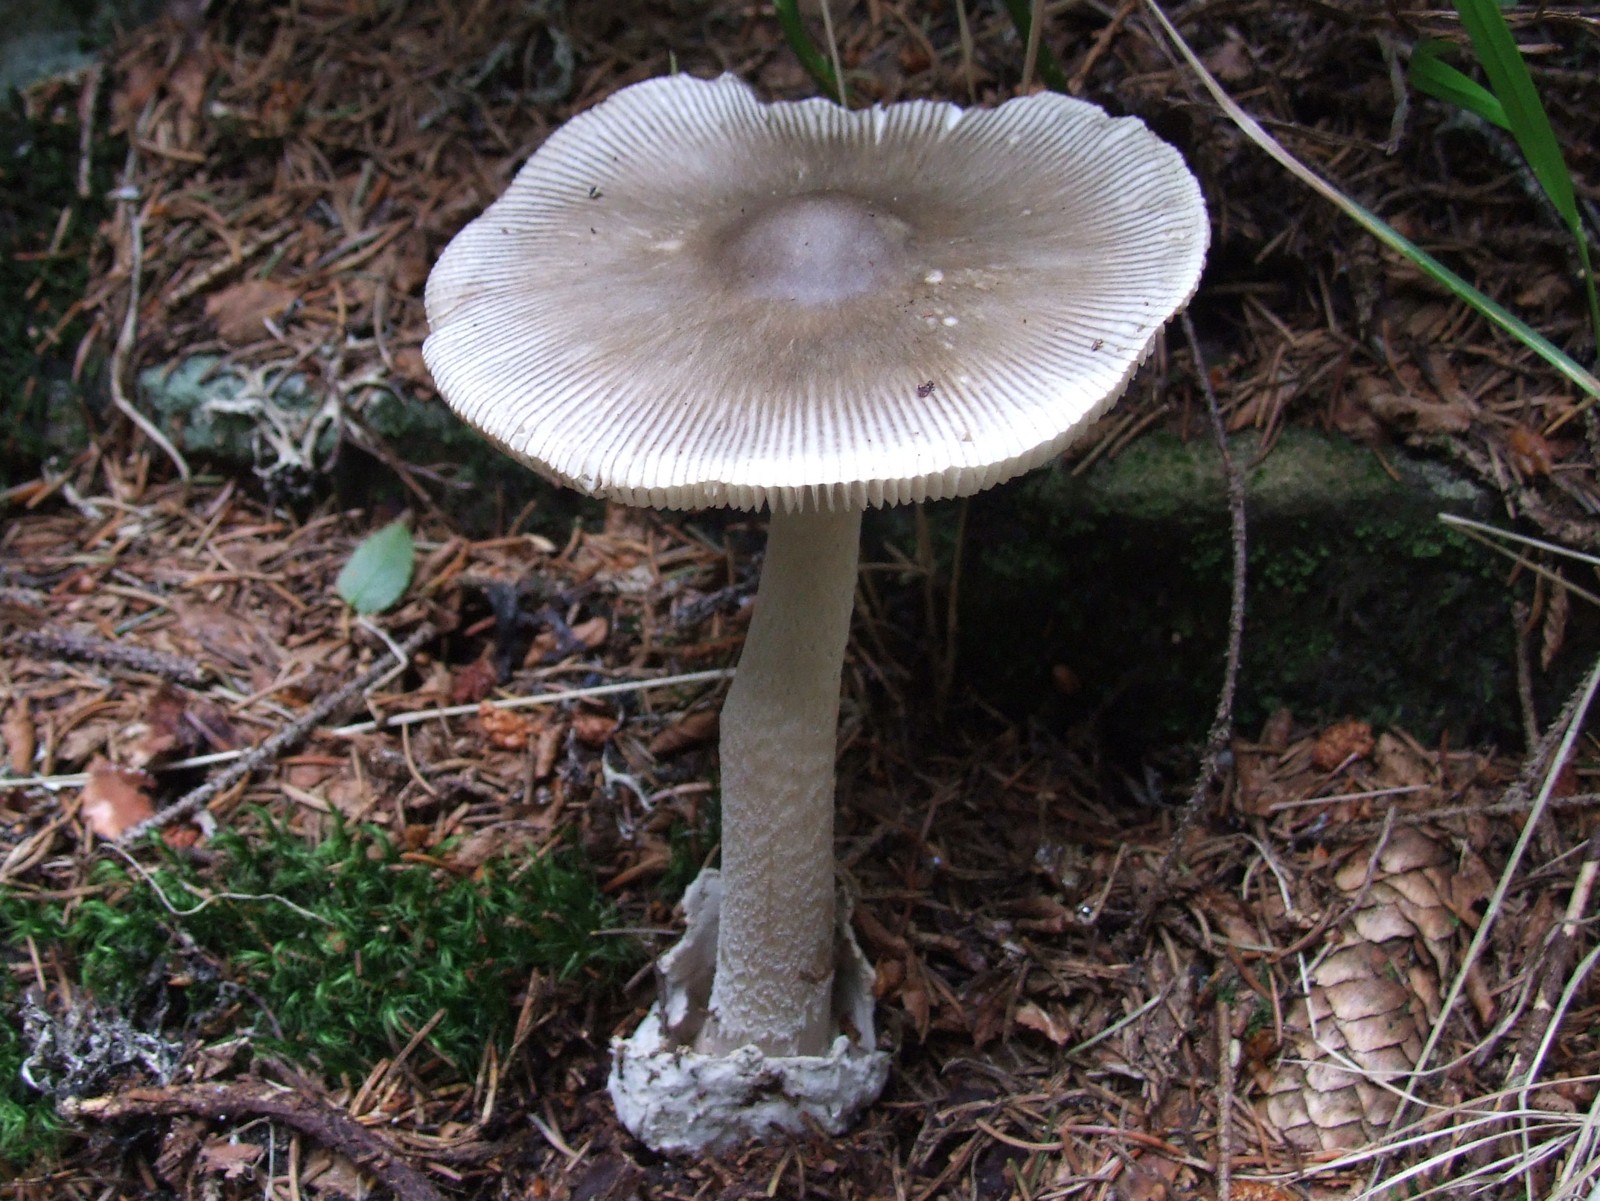
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Источник фотографии · CC BY-SA 4.0Amanita vaginata
Важнейшие отличия
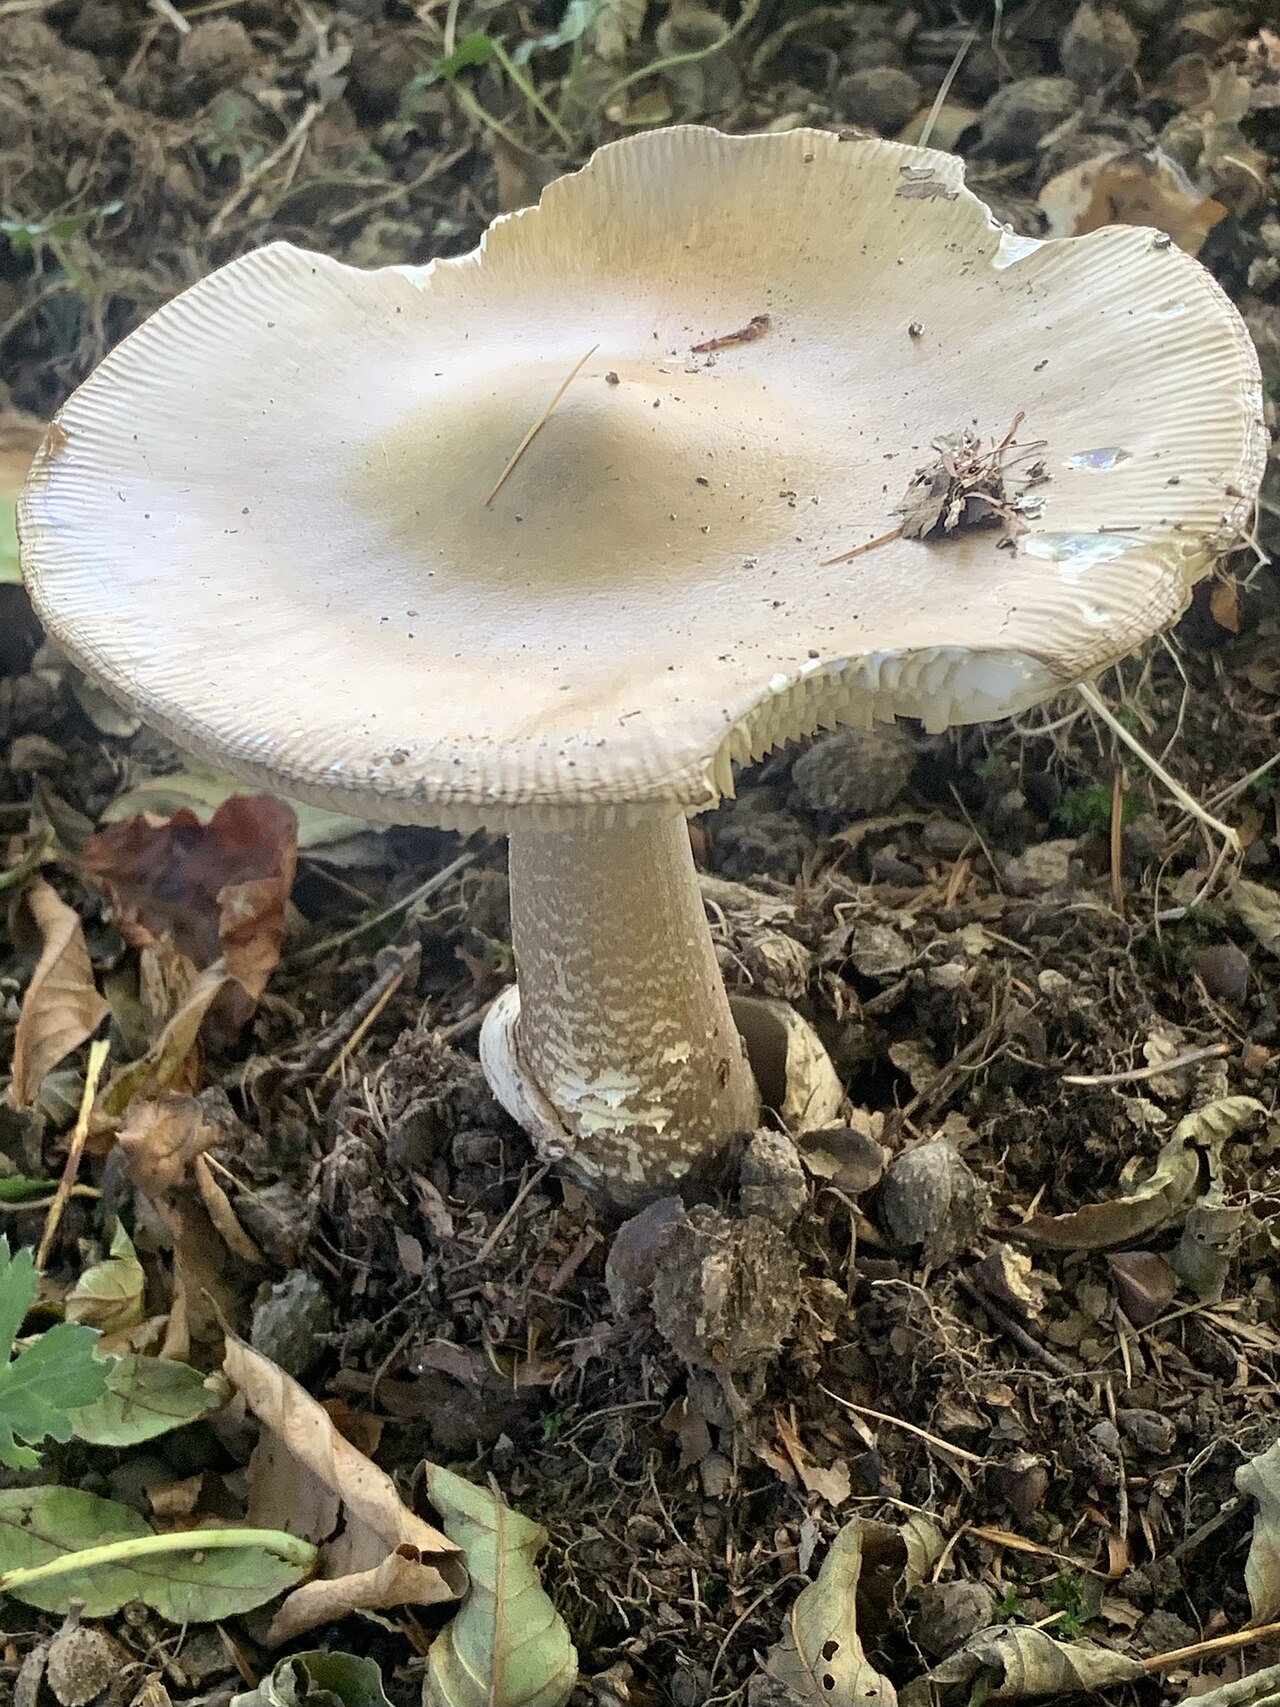
Мухомор серый (Amanita vaginata) отличается гладкой белой ножкой, лишенной темных чешуек и зигзагообразного рисунка.
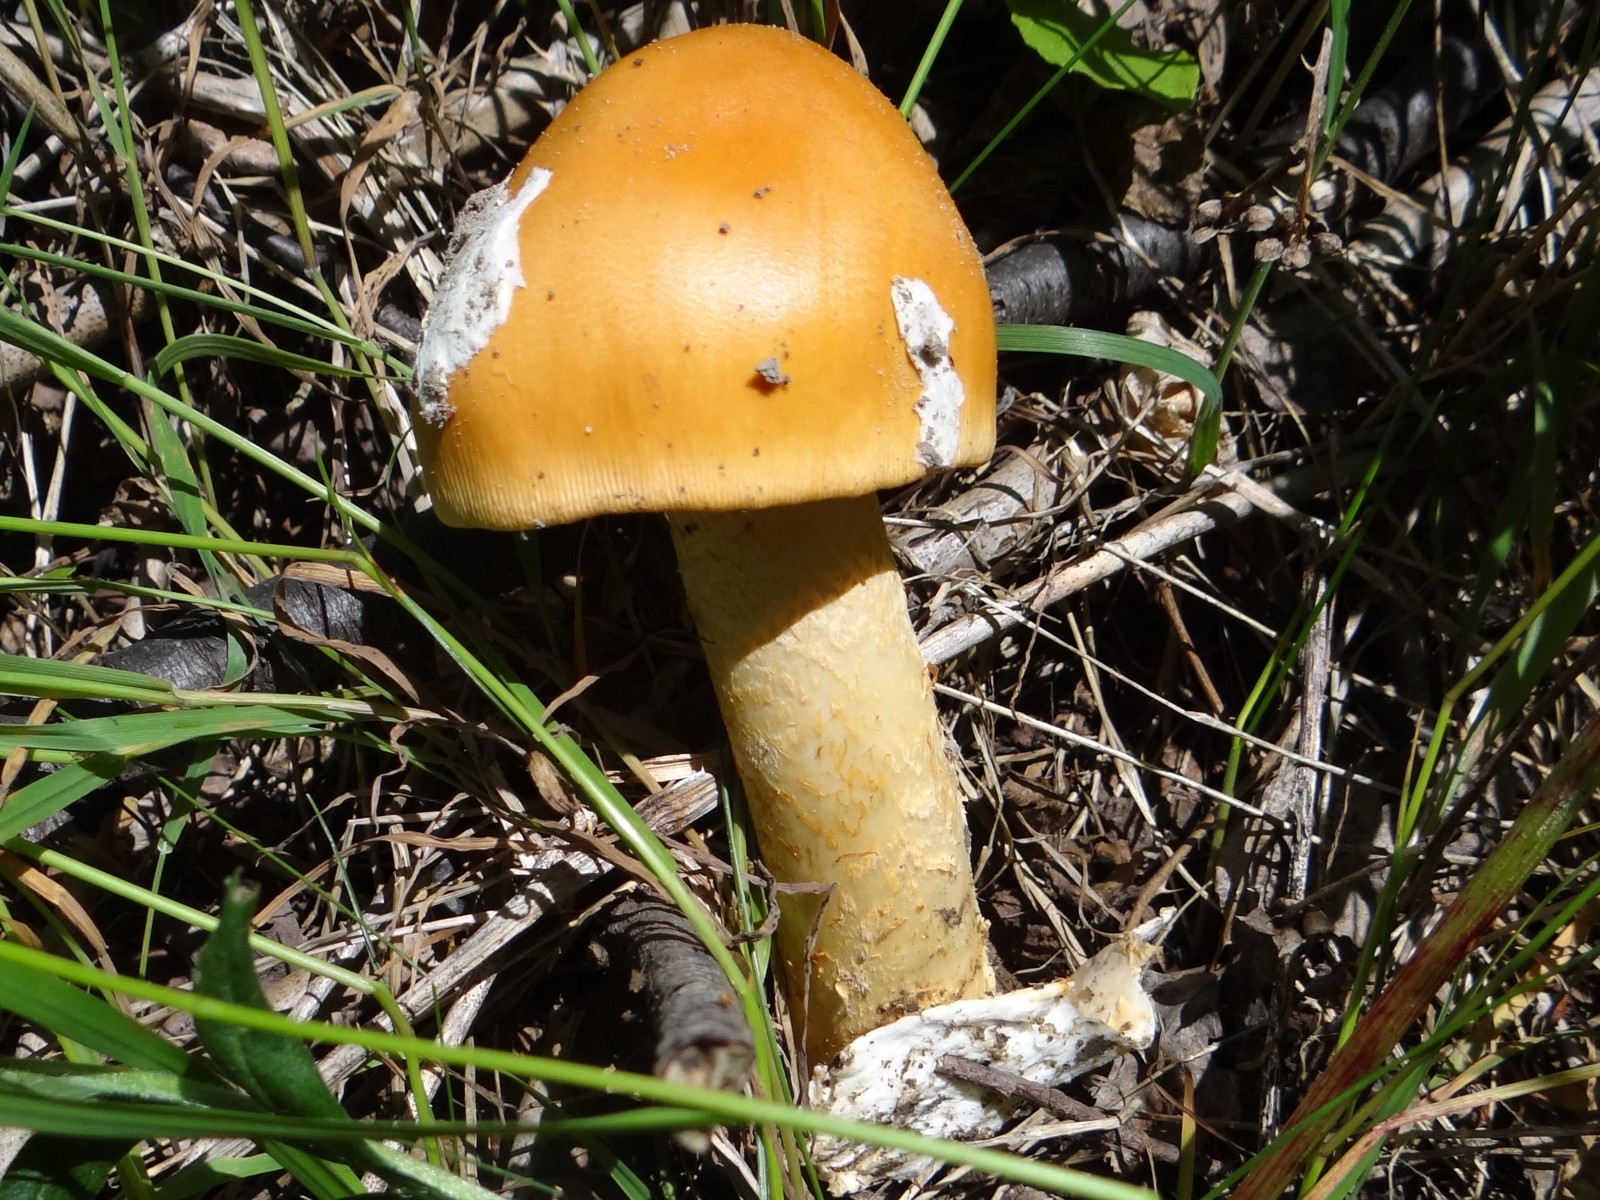
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Источник фотографии · CC BY-SA 4.0Amanita crocea
Важнейшие отличия
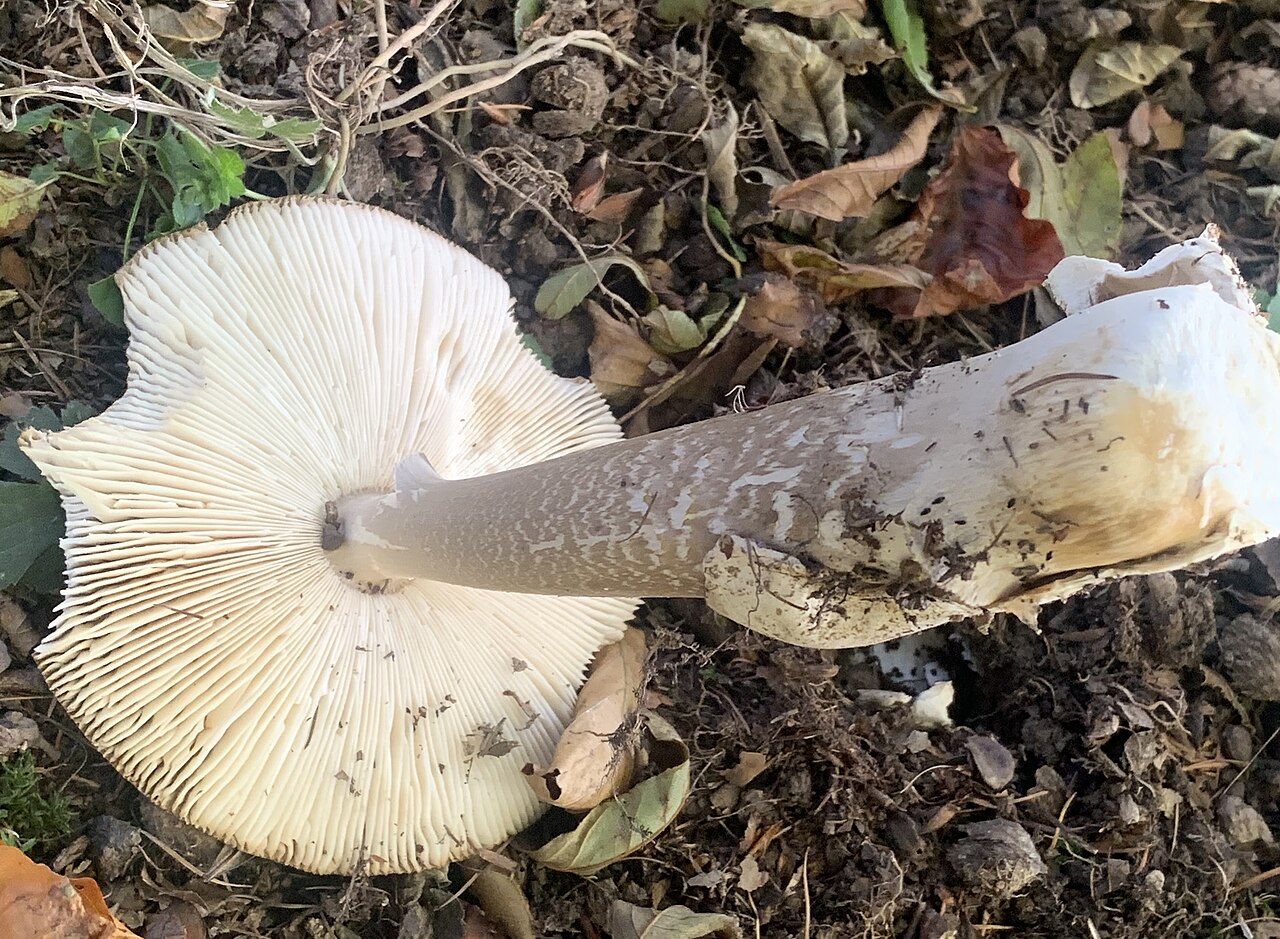
Поплавок шафранный (Amanita crocea) имеет шляпку от ярко-шафранового до оранжево-жёлтого цвета и вольву, окрашенную изнутри в оранжевый цвет.
Amanita pantherina
Важнейшие отличия
Вид можно спутать с сильно ядовитым мухомором пантерным (Amanita pantherina). Мухомор пантерный имеет выраженное кольцо на ножке и клубень с валиками у основания, однако под дождем или у старых экземпляров кольцо может стереться и отпасть.
Amanita friabilis
Важнейшие отличия
Amanita friabilis значительно меньше (шляпка до 6 см), имеет более мелкие споры и встречается исключительно под ольхой.
Amanita fulva
Важнейшие отличия
Мухомор ржаво-коричневый (Amanita fulva) имеет шляпку лисье-рыжих и палево-оранжевых оттенков, гладкую ножку и ржавеющую вольву.
FAQ
Ядовит ли мухомор Сесилии?
В сыром виде гриб токсичен, но после предварительного отваривания со сливом воды безопасен.
Почему гриб получил название «Сесилия»?
Миколог Майлз Беркли назвал его в честь жены Сесилии, создававшей научные иллюстрации грибов.
В каких лесах произрастает этот вид?
В широколиственных и смешанных лесах, отдавая предпочтение дубравам и буковым рощам.
Какие почвы предпочитает мухомор Сесилии?
Он предпочитает богатые известью суглинистые и плодородные нейтральные почвы.
Когда длится сезон сбора гриба?
Плодоношение продолжается с конца июня по ноябрь, достигая пика в августе и сентябре.
Какова обязательная подготовка перед едой?
Обязательно отваривание в течение двадцати минут с обязательным сливом отвара.
Как этот вид называют в Великобритании?
В Англии за ним закрепилось народное название «snakeskin grisette» — змеекожий поплавок.
Применялся ли гриб для изготовления чернил?
Да, натуралисты Англии делали из пигментов его шляпки коричневые чернила для записей.
Каков вкус гриба после термической обработки?
Мякоть обладает приятным сладковато-ореховым привкусом и плотной нежной текстурой.
Существовали ли защитные поверья с этим грибом?
В альпийских селах его раскладывали у хлевов как оберег от укусов настоящих змей.
Любитель
Названия и история
- Obowiązująca nazwa krajowa
- Muchomor złotawy
- Obowiązująca nazwa taksonomiczna
- Amanita ceciliae (Berk. & Broome) Bas
- Pozostałe nazwy
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Наблюдения в домашних условиях
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: белый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: шаровидный. Форма споры: шаровидный. Форма споры: почти шаровидный. Форма споры: шаровидный. Форма споры: шаровидный (почти). Форма споры: шаровидный. Форма споры: шаровидный (почти).
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 9,5–25 µm, ширина 8,6–25 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Известковость почвы
- Известковость почвы: известковый.
- Лиственные деревья поблизости
- Лиственные деревья поблизости: бук.
Лиственные деревья поблизости: граб.
Лиственные деревья поблизости: дуб. - Хвойные деревья поблизости
- Хвойные деревья поблизости: пихта.
- Способ питания
- Способ питания: Микоризный.
Некулинарное применение
Непищевое применение мухомора Сесилии оставило заметный след в традиционных сельских ремеслах и фольклорных обрядах Британских островов и альпийских регионов. В XIX веке в сельских районах Англии и Уэльса пигменты, содержащиеся в кожице перезревших шляпок, применялись естествоиспытателями и рисовальщиками для кустарного изготовления темно-коричневой растительной сепии. Полученная вытяжка в смеси со смолами использовалась для создания стойких чернил, которыми велись полевые дневники и натурные зарисовки. В этнографических свидетельствах из горных долин Швейцарии и Северной Италии упоминается использование шляпок этого гриба в качестве защитных оберегов: их раскладывали у входов в загоны для скота, веря, что чешуйчатый «змеиный» узор отпугивает ядовитых гадюк и защищает коров от укусов. В современной образовательной микологии гриб служит классическим примером редукции частного покрывала и строения рудиментарной вольвы в экспозициях биологических музеев.
История и культура
Вид был научно описан и назван в 1854 году выдающимся британским микологом Майлзом Джозефом Беркли в честь его супруги Сесилии Эммы Беркли. Сесилия не просто разделяла увлечение мужа, но и была талантливой художницей, создавшей сотни тонких ботанических акварелей грибов, иллюстрировавших фундаментальные научные публикации супруга. Это название стало одним из редких и значимых памятников женского вклада в европейскую микологию XIX века. В народной культуре Великобритании гриб получил образное название «snakeskin grisette» («змеекожий поплавок») за фрагментарный чешуйчатый рисунок ножки и серые хлопья на шляпке, которые ассоциировались в сельских поверьях со змеиным покровом. В континентальной Европе викторианской эпохи гриб часто фигурировал в литературе под именами «мухомор странный» или «мухомор двойственный» из-за внушительных размеров, казавшихся натуралистам аномальными для секции хрупких поплавков.
Съедобность и безопасность
Мухомор Сесилии относится к съедобным грибам высокого качества в своей группе, однако требует строгого соблюдения мер безопасности. В сыром состоянии плодовые тела содержат термолабильные токсины и гемолитические субстанции, способные спровоцировать сильное воспаление органов пищеварения и общее отравление. Термическая обработка полностью ликвидирует эту опасность: обязательной процедурой перед кулинарным использованием является длительное отваривание в течение двадцати минут с непременным удалением всей жидкой фракции. Прошедшая тепловую обработку мякоть абсолютно безвредна. По вкусовым характеристикам гриб превосходит большинство представителей секции благодаря выраженному сладко-ореховому привкусу и плотной, сочной консистенции. В кулинарных традициях Франции, Италии и Испании мухомор Сесилии высоко ценится сельскими собирателями как сезонный трофей. Напротив, в странах Восточной Европы гриб практически не собирается широкими слоями населения из-за внешней массивности, вызывающей опасения и ассоциации с опасными мухоморами.
Местообитание и распространение
Мухомор Сесилии широко распространен в умеренной и теплоумеренной зонах Евразии. Его природный ареал охватывает большую часть Европы — от Великобритании и Скандинавии до Средиземноморского бассейна, а также лесные области Азии; прежние же указания на широкое распространение в Северной Америке основывались на широком понимании вида и относятся к другим таксонам. Гриб отдает предпочтение старовозрастным широколиственным и смешанным лесам, прогреваемым дубравам, буковым рощам и старым паркам. Основными симбиотическими партнерами выступают дуб, бук, граб, липа, каштан и лещина; значительно реже в северных частях ареала гриб вступает в контакт с хвойными породами, в частности с пихтой и сосной. Вид проявляет выраженное тяготение к плодородным, богатым известью суглинистым грунтам, нейтральным почвам с развитым слоем листового перегноя. В горных областях Центральной и Южной Европы селится в предгорьях и на склонах до высоты около тысячи метров. Сезон плодоношения охватывает период со второй половины лета до глубокой осени. Первые грибы появляются в конце июня или июле, наибольшая частота встреч фиксируется в августе и сентябре, а в южных регионах Европы плодоношение длится до конца ноября.
Исследователь
Съедобность и кулинария
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Съедобность
- Съедобный — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, оценка автора, без исследования клинической безопасности
- Употребление в сыром виде
- Ядовитый
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Список Amanita inaurata*: токсичны в сыром или недоваренном виде; учебный источник, не анализ токсина вида
- Съедобность
- Ядовитый
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Список Amanita inaurata*: токсичны в сыром или недоваренном виде; учебный источник, не анализ токсина вида
- Требуемая кулинарная обработка
- Требует кулинарной обработки
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Научные названия и таксономия
- Действующее научное название
Amanita ceciliae (Berk. & Broome) Bas
Научные названия и таксономия
Amanita ceciliae (Berk. & Broome) Bas относится к семейству мухоморовых (Amanitaceae) и секции Vaginatae. Он был описан в 1854 году Беркли и Брумом под базонимом Agaricus ceciliae, а в род Amanita перенесён Корнелисом Басом в 80-х годах XX века.
Научные названия и таксономия
В более ранних микологических работах этот вид упоминался в том числе под названиями Amanita inaurata, Amanitopsis inaurata и Amanitopsis ceciliae. Название Amanita strangulata, в свою очередь, использовалось многими авторами в широком, неоднозначном смысле (sensu auct. mult.).
Исторический объём названий и трактовок вида
В англоязычной литературе используется название Snakeskin Grisette, а в немецкой — Riesen-Scheidenstreifling.
Объем таксона и ограничения идентификации
Таксономические исследования показали, что часть североамериканских грибов, описывавшихся ранее как A. ceciliae или A. inaurata, относится к отдельным видам, таким как Amanita rhacopus и Amanita variicolor. Современная трактовка A. ceciliae относится к европейским популяциям.
Объем таксона и ограничения идентификации
В филогенетических исследованиях секции Vaginatae подтверждено положение европейского таксона A. ceciliae (представленного в том числе сборами из Венгрии) с использованием анализа последовательностей четырёх локусов: ITS, LSU, RPB1 и TEF1-α.
- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[13] [10] [14] [3]
Экология и распространение
Лабораторная диагностика
Dane ustrukturyzowane
Базидии
- Длина стеригмы базидии
- Длина стеригмы базидии: до 8,4 µm. [34]
- Число спор на базидии
- Число спор на базидии составляет 4. [36]
Число спор на базидии составляет 2. [36]
Число спор на базидии составляет 2. [34]
Число спор на базидии составляет 4. [34] - Форма базидии
- Форма базидии: булавовидный. [36]
- Ширина стеригмы
- Ширина стеригмы: до 3,1 µm. [34]
- Пряжки
- Пряжки: не наблюдалось. [36]
Прочие лабораторные признаки
- Фертильность края пластинок
- Фертильность края пластинок: стерильная. [36]
- Измерение субгимениальной зоны
- Измерение субгимениальной зоны: 15–35 µm (измерение wst-near). [34]
Измерение субгимениальной зоны: 50–70 µm (измерение wst-far). [34] - Расположение клеток общего покрывала
- Расположение клеток общего покрывала: конечные (на шляпке). [34]
Расположение клеток общего покрывала: короткими рядами (на шляпке). [34]
Кожица шляпки
- Оптический вид гиф кожицы шляпки
- Оптический вид гиф кожицы шляпки: гиалиновый (верхний слой кожицы шляпки). [36]
- Расположение гиф кожицы шляпки
- Расположение гиф кожицы шляпки: почти радиальное. [34]
- Форма элементов кожицы шляпки
- Форма элементов кожицы шляпки: цилиндрический. [36]
Форма элементов кожицы шляпки: цилиндрический. [36] - Ширина элементов кожицы шляпки
- Ширина элементов кожицы шляпки: 1,1–7,7 µm. [34]
Ширина элементов кожицы шляпки: 0,8–3 µm. [36]
Ширина элементов кожицы шляпки: 2,5–4 µm. [36] - Ветвление гифы кожицы
- Ветвление гифы кожицы: разветвлённый. [34]
- Погружение гиф кожицы в желатинозное вещество
- Погружение гиф кожицы в желатинозное вещество: присутствует. [36]
Погружение гиф кожицы в желатинозное вещество: присутствует (только у поверхности, в поверхностном слое кожицы шляпки). [34]
Погружение гиф кожицы в желатинозное вещество: без желатинизации (в нижнем слое кожицы шляпки). [34]
Погружение гиф кожицы в желатинозное вещество: присутствует (только у поверхности, в поверхностном слое кожицы шляпки, у зрелого плодового тела). [34] - Окраска пигмента кожицы
- Окраска пигмента кожицы: коричневый. [34]
Химические реакции
Споры
- Среднее отношение длины споры к ширине
- Среднее отношение длины споры к ширине: 1,04 (среднее значение). [32]
- Профиль адаксиальной стороны базидиоспоры
- Профиль адаксиальной стороны базидиоспоры: уплощённый. [34]
- Наличие придатка рубчика базидиоспоры
- Наличие придатка рубчика базидиоспоры: присутствует. [34]
- Положение апикулюса базидиоспоры
- Положение апикулюса базидиоспоры: почти боковой. [34]
- Форма хилярного отростка базидиоспоры
- Форма хилярного отростка базидиоспоры: цилиндрический. [34]
- Цвет спор под микроскопом
- Цвет спор под микроскопом: гиалиновый. [36]
Цвет спор под микроскопом: гиалиновый. [34] - Наличие липидных телец
- Наличие липидных телец: присутствует. [36]
- Отношение длины споры к ширине
- Отношение длины споры к ширине: 0,94–1,14. [36]
Отношение длины споры к ширине: 1–1,36. [34] - Форма споры
- Форма споры: шаровидный. [10]
Форма споры: шаровидный. [9]
Форма споры: почти шаровидный. [9]
Форма споры: шаровидный. [36]
Форма споры: шаровидный (почти). [36]
Форма споры: шаровидный. [34]
Форма споры: шаровидный (почти). [34] - Объём споры
- Объём споры: 410–2030 µm³. [36]
- Толщина оболочки споры
- Толщина оболочки споры: тонкостенный. [34]
Трама гименофора
Материал и методы исследований
Описание признаков — источник и охват
Материал: Атласное описание мякоти К. Тейкала/ČMS; запах nevýrazný.
Объём интерпретации: Задокументированное наблюдение.
Ограничения: Описание автора без номера исследованного образца; невыразительный запах не отождествлялся с химическим отсутствием ароматических веществ.
Микроскопические данные — источник и ограничения
Материал: Среднее значение Q спор для выборки из 4813,100 измерений автора M. Zugna; тот же материал, что и для отдельного микроскопического исследования, не новый опыт.
Объём интерпретации: Задокументированное наблюдение.
Ограничения: Среднее указано непосредственно автором; независимые границы длины и ширины не разделялись.
Исследование состава и активности — Akata и др. (2012)
Материал: Плодовые тела из Анатолии, определённые как Amanita ceciliae, AKATA 3037,850 м; метанольный экстракт высушенного материала. Тест DPPH,517 нм,30 мин в темноте; три повторности.
Объём интерпретации: Задокументированное наблюдение.
Ограничения: Результат in vitro, а не подтверждённое лечение или безопасная пищевая доза. В данной работе отсутствует молекулярная верификация определения; материал не польский. В резюме содержится противоречивое указание 96,16% при 4,51 мг/мл; непосредственно считанная строка даёт 95,35 ± 0,10% при 4,65 мг/мл.
Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[10]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[11]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[6]- Результаты, приведённые в источниках — Число спор на базидии
- Liczba zarodników na jednej podstawce wynosi 2. [36] [34]
Liczba zarodników na jednej podstawce wynosi 4. [36] [34] - Результаты, приведённые в источниках — Ширина гифы общего покрывала
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [34]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [36]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [36]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [34]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [34]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [34]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [34]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [34]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [36]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [36]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [36]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [36]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [36]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [36]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [36]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [36]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [36]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [36]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [36]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [36]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [34]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [34]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [34]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [10]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Названия и границы вида
Польское название: Muchomor złotawy — название, используемое в польском перечне Воеводы 2003. Автор ссылается на Боровскую и Скиргелло в Гарнвайднере 1993; более раннее издание не изучалось. Перечень также сохраняет историческое название Доманьского 1955 a. Шесть названий из атласа Ekologia.pl записаны как альтернативные с атласным происхождением. Это не делает их официальными названиями и не подтверждает прежних неразрешённых меток записи.
Первичные публикации: Беркли и Брум описали Agaricus ceciliae в 1854 г., позиция 663, с. 396–397. Бас в 1984 г., с. 192, после изучения типового материала в Кью образовал комбинацию Amanita ceciliae. Год 1984 указан в самой публикации; более раннее расхождение 1983/1984 остаётся в истории. Бас отделил ошибочные более поздние применения названия strangulatus от первоначального описания Фриса 1838, относящегося к другому, неразрешённому виду. Настоящий Agaricus strangulatus не был добавлен в качестве простого синонима.
Объём таксона и материал за пределами Европы: Данная работа касается европейского понимания Amanita ceciliae, включая отдельно задокументированный венгерский образец DB-2018-07-08-5/AD22. Это не означает переопределения всех атласных образцов или отождествления мексиканского, гватемальского aff. ceciliae или A. sororcula с европейским материалом. Ламберт и соавторы выделили из прежних североамериканских определений A. rhacopus и A. variicolor на основе морфологии, типов и ITS. Ограничение касается также переноса фотографий, сообщений об отравлениях и сведений об употреблении в пищу.
Распространение и плодоношение в Польше
Распространение и месяцы: Воевода указывает польские местонахождения, в частности, из окрестностей Эльблонга, Великопольского национального парка, Кампиноса, Глогува, Дембовца, Аннополя, Бабьей Гуры, Пенин и Полесья, а также период июнь–октябрь. Это обзор литературы, а не новый мониторинг всей Польши. GRej содержит дальнейшие, явно определённые польские наблюдения. Месяцы внесены из польского перечня; отдельные даты сборов не пересчитывались в границы сезона.
Местообитание и осторожность интерпретации: Польский перечень указывает почву в лиственных, хвойных и смешанных лесах, также под елью. Сноварский описывает предпочтение известковых почв и нечастые находки. Присутствие рядом с деревом не превращалось в молекулярное доказательство микоризной связи. Историческая категория региональной угрозы не является действующей национальной правовой охраной. Зарубежные месяцы и статусы красных списков не заменяют польских данных.
Исследование итальянского сбора 4813
Материал и метод: Сбор от 19.08.2012 происходит из букового леса возле Прато-Ротондо, Терамо, 1460 м; собрал Бруно де Руво, определил Марино Дзунья. Макроописание составлено по фотографиям. Сухой материал регидратировали водой или 5%KOH; препараты просматривали в воде или 6%аммиачном конго красном. Реактив Мельцера служил для оценки амилоидности. Измерено 100 зрелых спор из негимениальных частей в боковой проекции; остальные типы клеток — не менее 20 раз. Единая среда не приписывалась всем измерениям.
Результаты: Полные границы спор составляют 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, среднее Q 1,04, объём 410–2030 µm³. Они от шаровидных до почти шаровидных, гиалиновые, неамилоидные, с одной крупной центральной масляной каплей. Базидии имеют размеры 38,63–68,53×10,39–16,33 µm, обычно 4, редко 2 споры. Пряжки в исследованных тканях не наблюдались. Центральные диапазоны, средние значения и исходные оговорки сохранены в соответствии с оригиналом.
Ограничения: Это собственные наблюдения автора, опубликованные сборщиком в блоге; более ранняя версия на форуме AMB не изучалась. Образец не является польским измерением. Два слоя кожицы имеют раздельные диапазоны ширины гиф; из них не формировался единый безусловный диапазон. Отсутствие наблюдений маргинальных клеток не служит доказательством отсутствия всех цистид.
Ревизия европейских эксикатов
Материал и результат: Таллосс приводит 100 измерений из 5 плодовых тел и 4 сборов. Полные границы спор составляют 9,5–25×8,6–25 µm при более узких центральных диапазонах 10,3–14,9×9,5–14,3 µm; источник явно упоминает немногочисленные гигантские споры. Базидии 65–89×13,8–19,1 µm являются 4-стеригмовыми или редко 2-стеригмовыми. Среда каждого измерения не указана. Заметки Баса о типе не превращались в независимое собственное исследование Таллосса.
Детальные части: Трама пластинок билатеральная. Обычные гифы 2,8–5,9 µm отделены от сосудистых 2,8–23 µm. Удлинённые клетки основания субгимения достигают 74×16,7 µm. Отдельно описанный сбор E.W.Brown, RET270-1, Уэльс, 20.09.1994, имеет гифы кожицы 1,1–7,7 µm и внутриклеточный коричневый пигмент субпеллиса. Эти свойства не переносились безоговорочно на все слои и коллекции.
Что остаётся в документации: Сублатеральный цилиндрический отросток рубчика, адаксиальное уплощение и тонкая стенка относятся к базидиоспоре. Редкая широкоэллипсоидная форма требует недостающего квалификатора частоты. Степень желатинизации, толщина слоёв, различные формы и стенки клеток покрывала сохраняют раздельные контексты; они не заменялись произвольной степенью «сильный».
Молекулярные данные и исходный материал
Европа: Варга и др. (2024), таблица 1, приводят собственный венгерский образец DB-2018-07-08-5(AD22) из Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 и TEF1α PP273683. Французский JMM20180914, ITS MN490692, ссылается на Хансса и Моро 2020; датский JV05-394, ITS UDB002315, отмечен как неопубликованный. Строки не являются тремя независимыми исследованиями одного и того же польского образца. Корректные выходные данные работы — Mycological Progress 23, статья 38; не 63.
Иран: Работа Resources of Iranian agarics(2022) указывает для A. ceciliae ITS OK299150 и LSU OK299170. В таблице антиоксидантного потенциала возле этого вида стоит ND. Эта таблица не рассматривалась как новое определение активности экстракта, и иранские результаты не подставлялись в польский сезон. Последовательности представляют собой идентификаторы, указанные авторами; собственная выгрузка и повторное выравнивание последовательностей здесь не проводились.
Съедобность и доказательства вредности
Оценки и их основание: ČMS оценивает вид как съедобный с низкой кулинарной ценностью. Учебный материал SFMU помещает название Amanita inaurata среди токсичных в сыром или недоваренном виде грибов и отмечает звездочкой гемолизины. Эта запись не содержит специфического анализа токсина исследованного образца, индивидуальной серии пациентов или валидированных времени и температуры обработки. Оценки авторов приведены с их условиями; они не являются результатом клинического исследования.
Сообщение из Монтаны: Реестр NAMA приводит один взрослый случай, определенный как Amanita inaurata, Монтана, начало 0,6 ч, желудочно-кишечные симптомы, потоотделение, нистагм и нечеткость зрения. Сводка не доказывает идентичности с европейским A. ceciliae и не представляет для этой строки полного индивидуального расследования причинно-следственной связи. Сообщение не пропущено, но из него не выведена токсичность правильно определенного польского материала.
Ограничение обзора: В проверенных источниках не получено первичного, специфического для европейского вида анализа гемолизинов или полной клинической серии, однозначно определяющей безопасность. Это не доказывает отсутствия таких исследований. Не добавлены аматоксины, мусцимол или гарантии обезвреживания.
Состав и эксперимент с экстрактом
Материал и методы: Akata и др. (2012) исследовали анатолийские плодовые тела, определенные как A. ceciliae, AKATA 3037,850 м. Экстракт высушенного материала готовили метанолом. Проведен тест DPPH со считыванием при 517 нм через 30 мин в темноте, три повторности. Белок определяли методом Кьельдаля, коэффициент 6,25. Верификация определения по ДНК не приведена.
Считывание таблиц: Строка таблицы 2 указывает 4,65 мг/мл экстракта, выход 23,2% и RSA 95,35 ± 0,10%. Резюме связывает название вида с 96,16% и 4,51 мг/мл, в то время как таблица и описание результатов связывают эти вторые числа с Armillaria mellea. Записана считанная строка вместе с расхождением. Таблица 3: зола 10,75%, жир 5,91%, влажность 9,34%, белок 31,20%, углеводы 42,81%; отдельно не определяет нормализацию относительно сухой или свежей массы.
Значение: Это химическая активность in vitro, а не доказанное лечение, пищевая доза или технологическое внедрение. Результат активности и концентрация относятся к одному и тому же эксперименту, хотя типы записей модели разделены. Недостающие количественные параметры и неуказанная основа состава сохранены для расширения модели.
Поиск других применений и цепочка ссылок
Область поиска: Проверены медицинские, травяные, технические, красильные, пряные, культурные и биотехнологические применения под названиями ceciliae и inaurata. Считанные первичные источники подтверждают исследование экстракта и таксономии; они не показывают внедрения, лечения человека или производства лекарства. Традиционное использование не исключено одним лишь отсутствием исследований.
Нерешенные зацепки: Поиск указал на пакистанскую сводку Sultana и Qureshi 2007, описывающую название ceciliae как medicinal. Полный источник не получен: сервер вернул ошибку 500. Цель применения, доза и идентичность с европейским видом не выводились из фрагмента таблицы. Сообщения, обозначенные aff.ceciliae из Гватемалы, и более старые мексиканские названия также не были автоматически отождествлены с европейским видом. Точные запросы и статусы сохранены в документации.
Дополнение после расширения общей модели
Стеригмы и субгимений: В сводном европейском описании Tulloss ширина стеригмы достигает 3,1 микрометра. Нижняя граница не указана. Субгимениальная зона измерена отдельно в точках wst-near (15–35 микрометров) и wst-far (50–70 микрометров). Это два разных измерения источника; диапазон 15–70 микрометров из них не формировался. Количество слоев остается отдельной информацией, требующей расширения модели.
Кожица шляпки — отдельные сборы: Кожица сбора E. W. Browna имеет толщину 155–220 микрометров, а кожица зрелого образца Perreau 475 имеет 65–95 микрометров. Этот второй образец был оставлен на выставке перед высушиванием. Сборы не смешивались, а толщина всей кожицы не приписывалась ее отдельным слоям. У обоих автор описывает гель у самой поверхности, а у Browna — явно нежелатинизированный subpellis и субрадиальное расположение обычных гиф. Гиалиновость в сборе Zugny относится исключительно к покрытию ixocutis, а не к пигментированному слою cutis.
Клетки покрывала: В описании покрывала на шляпке Tulloss упоминает в том числе сферические и эллипсоидные клетки, а также их терминальное положение и короткие цепочки. Запись этих частей информации не заменяет недостающих определений «почти», грушевидной формы, доли клеток относительно гиф или отдельного подсчета до трех клеток в цепочке. Покрывало у основания ножки сбора Zugny сохраняет свой отдельный диапазон.
Верификация распространения — охват и ограничения
Материал: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Объем считывания: Документированное наблюдение.
Дата обзора: 19.10.2026.
Ограничения: Это обзор опубликованных определений; повторное определение материала или генотипирование не проводились.
Верификация распространения — охват и ограничения
Материал: Udokumentowany zbiór z województwa podkarpackiego.
Объем изучения: Фрагменты источников.
Изучен фрагмент источника; полный текст и методы не верифицировались.
Дата обзора: 21.10.2026.
Ограничения: Исходное определение и объем понятия сохранены. Новое исследование образцов или изучение всех цитируемых источником публикаций не заявлялись.
Объем разработки
Перед завершением запись требует дополнения или урегулирования.
- Поиск регионов произрастания требует учета.
Правовая основа и объём оценки
Аналитические результаты
Состав и лабораторная активность
- Активность исследованного экстракта
- Активность исследованного экстракта: антиоксидантная активность (экстракт, активность обнаружена, метанольный экстракт плодовых тел AKATA3037). [32]
- Концентрация воздействия исследуемого материала
- Концентрация воздействия исследуемого материала: 4,65 mg/ml (DPPH, экстракт, метанольный экстракт плодовых тел AKATA3037, приведённое значение). [32]
Основные вещества и их действие
Основные вещества и их действие
В лабораторных исследованиях, проведённых на метанольных экстрактах из высушенных плодовых тел, анализировали химический состав и антиоксидантные свойства тканей.
Основные вещества и их действие
Вытяжки из плодовых тел продемонстрировали способность нейтрализовать свободные радикалы в тесте DPPH.
Основные вещества и их действие
Экстракты из плодовых тел продемонстрировали в лабораторных условиях антиоксидантную активность на уровне 95,35 ± 0,10% при концентрации экстракта 4,65 мг/мл.
Основные вещества и их действие
Биохимический анализ сухой массы показал содержание 31,20% белка, 42,81% углеводов, 5,91% жира и 10,75% золы при остаточной влажности 9,34%.
Основные вещества и их действие
Антиоксидантная активность экстрактов, исследованная в лабораторных условиях, не является подтверждением лечебных свойств при употреблении гриба в пищу.
Основные вещества и их действие
Исследования генетических последовательностей в пределах секции Vaginatae подтверждают обособленность европейских эволюционных линий мухомора золотистого.
Местообитание и распространение
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Плодоношение | Источники |
|---|---|---|---|
| Польша | Подкарпатское воеводство | VI–X |
|
Источники
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (także [22])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (także [19])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (także [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (także [23])
- Marek Snowarski/GRej, Amanita ceciliae (także [24])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- Muchomor złotawy — czytelny opis materiału i źródłowe wyniki
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015