
Їстівний

Потребує обробки

У сирому вигляді отруйний

Установіть місцезнаходження, щоб побачити дані для свого регіону.
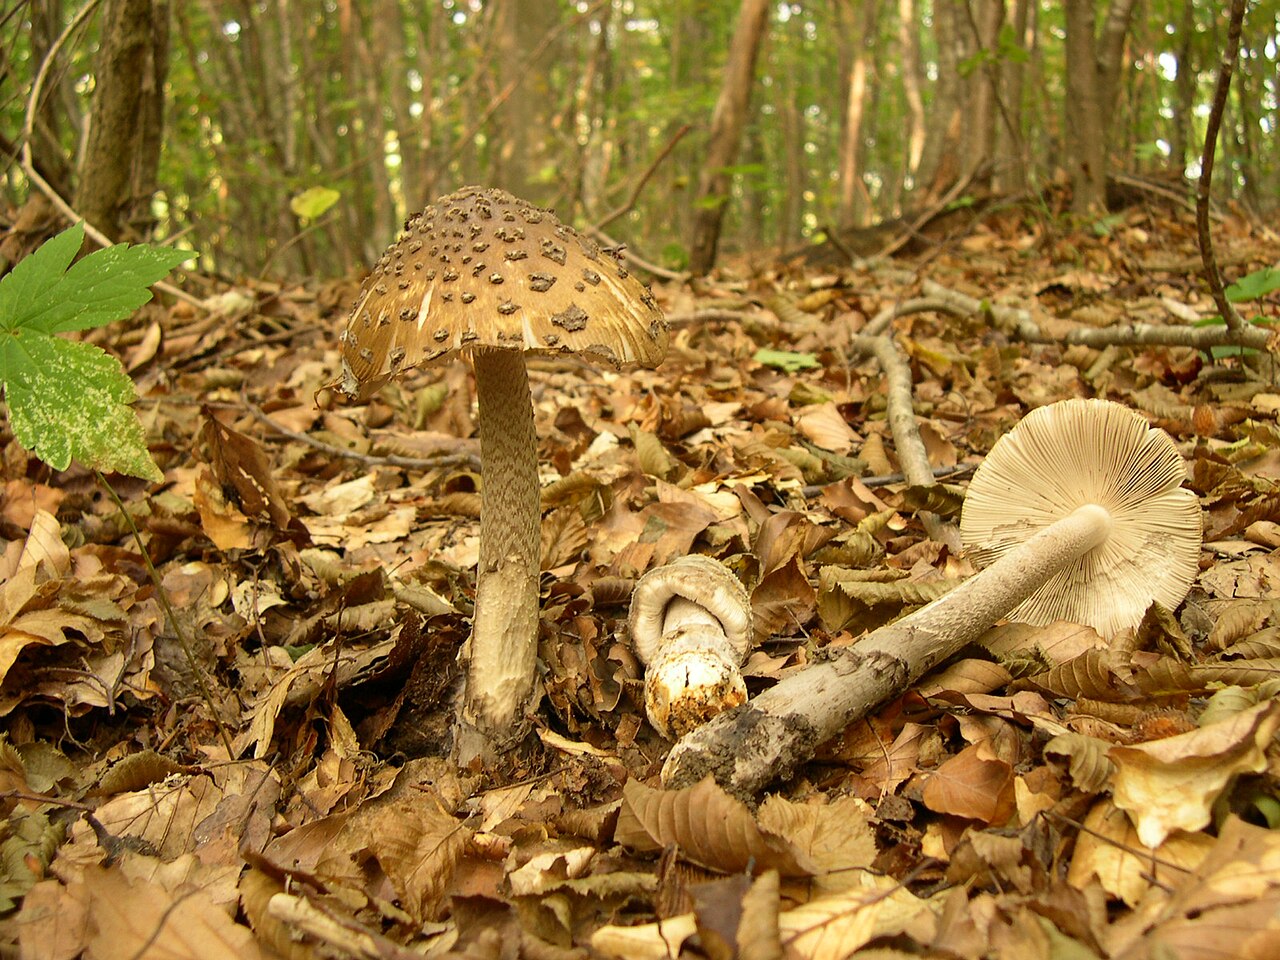
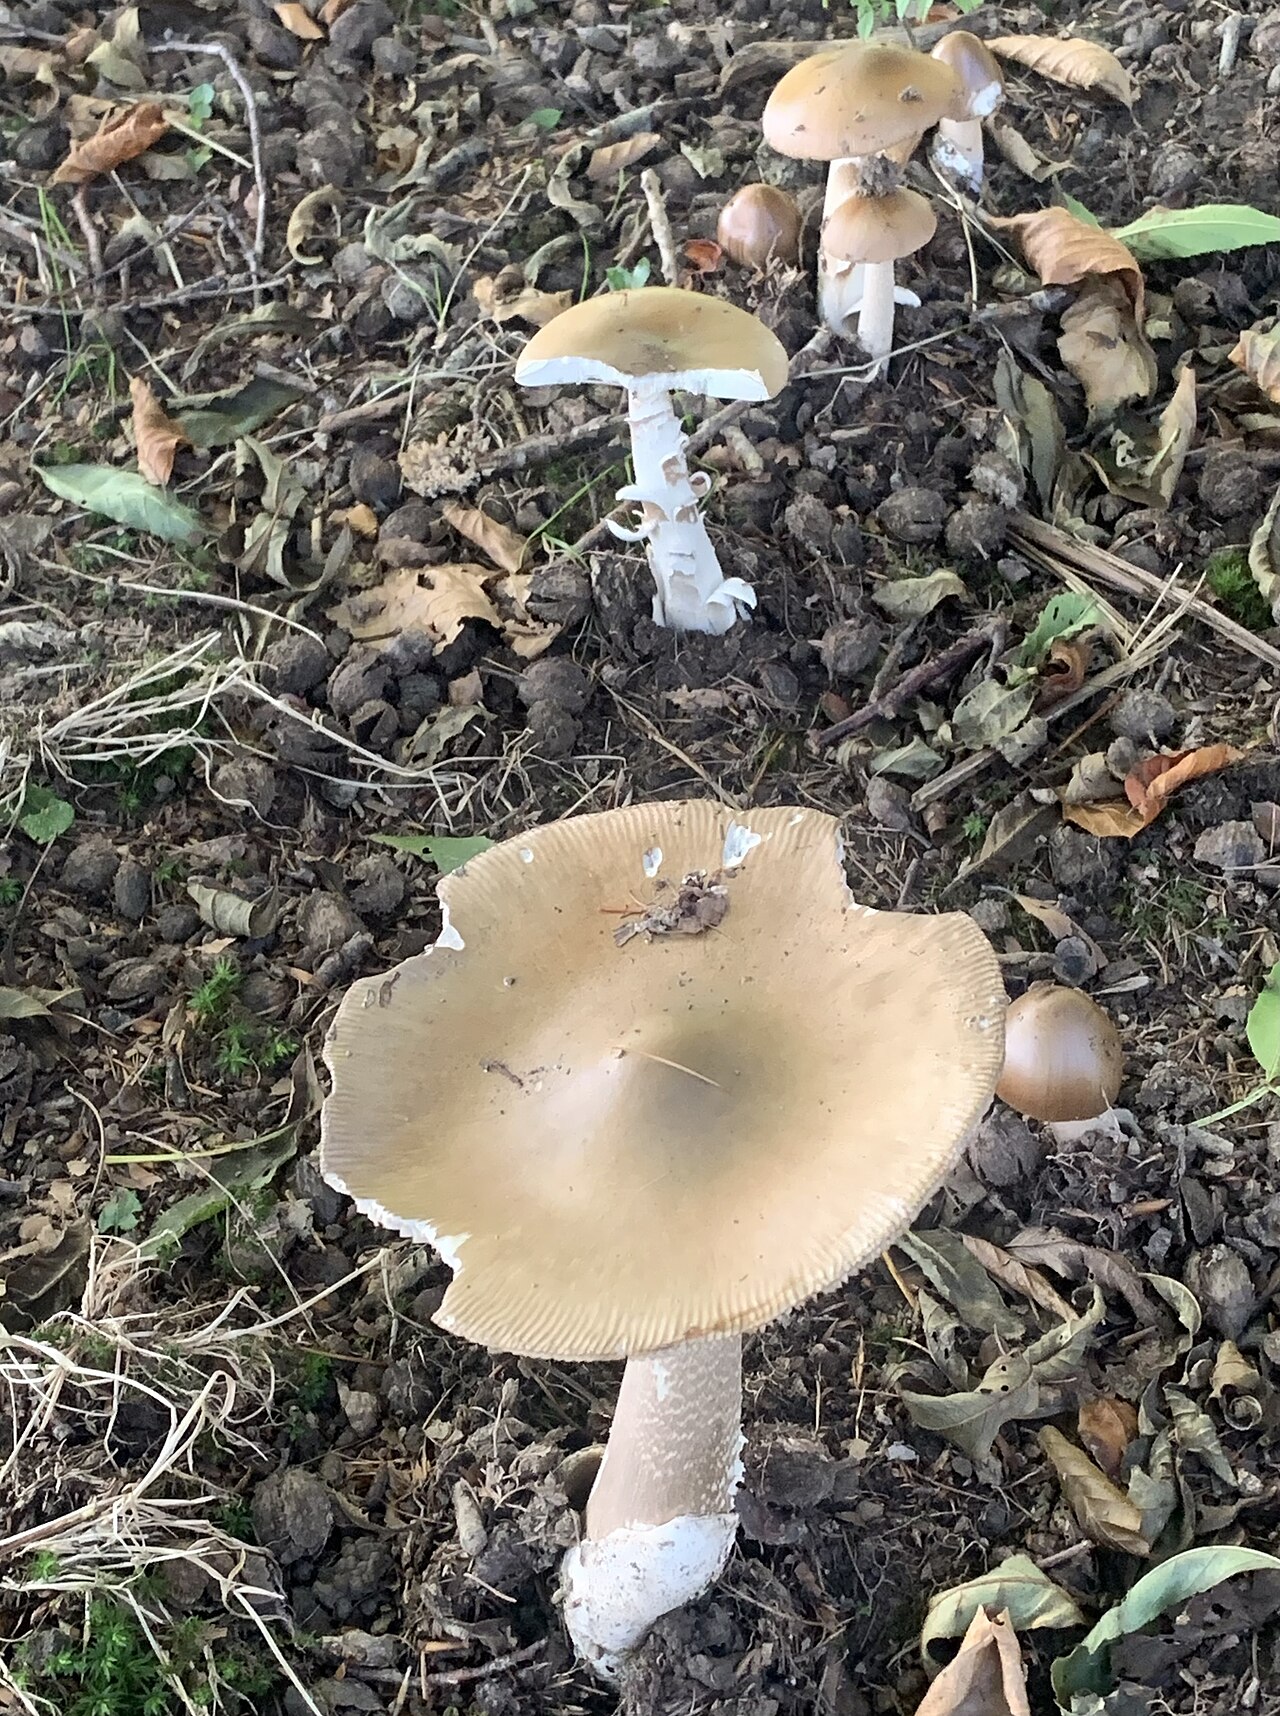
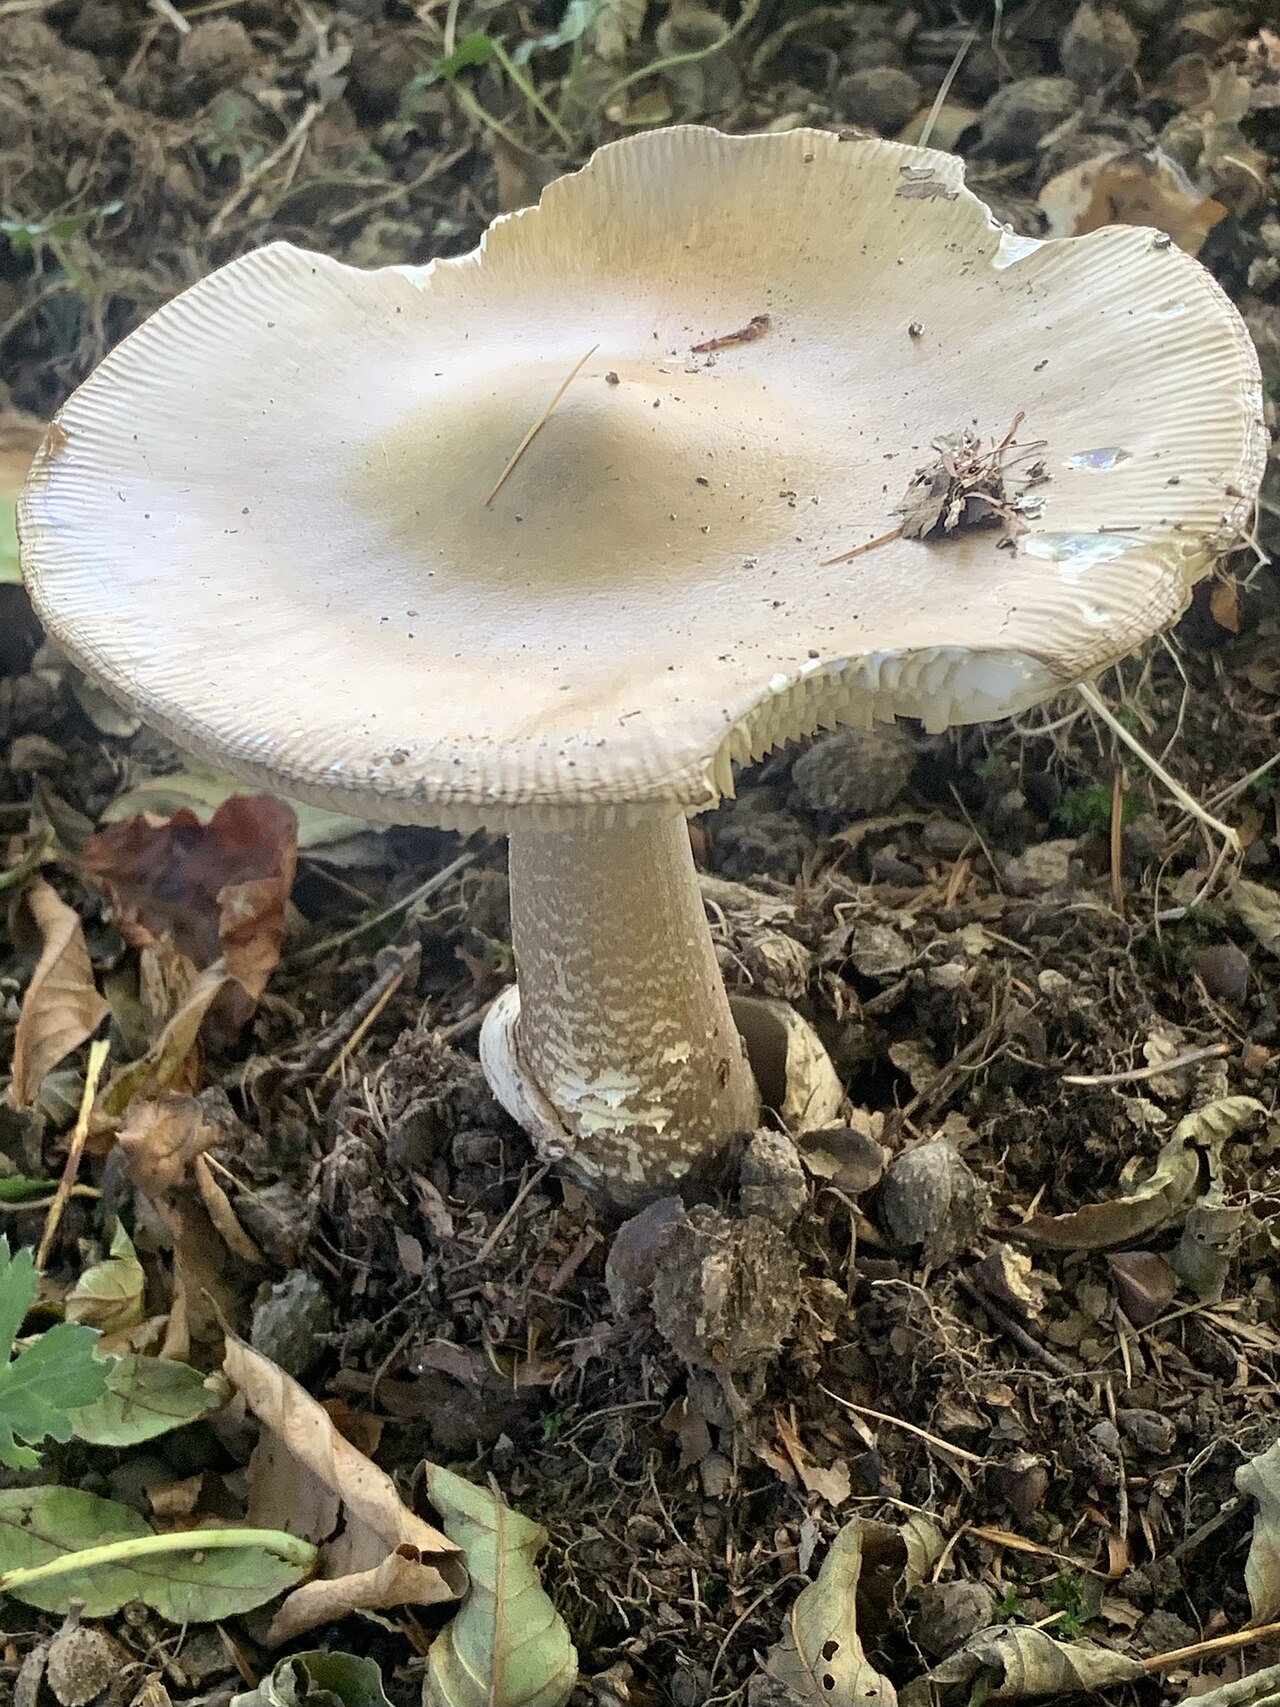
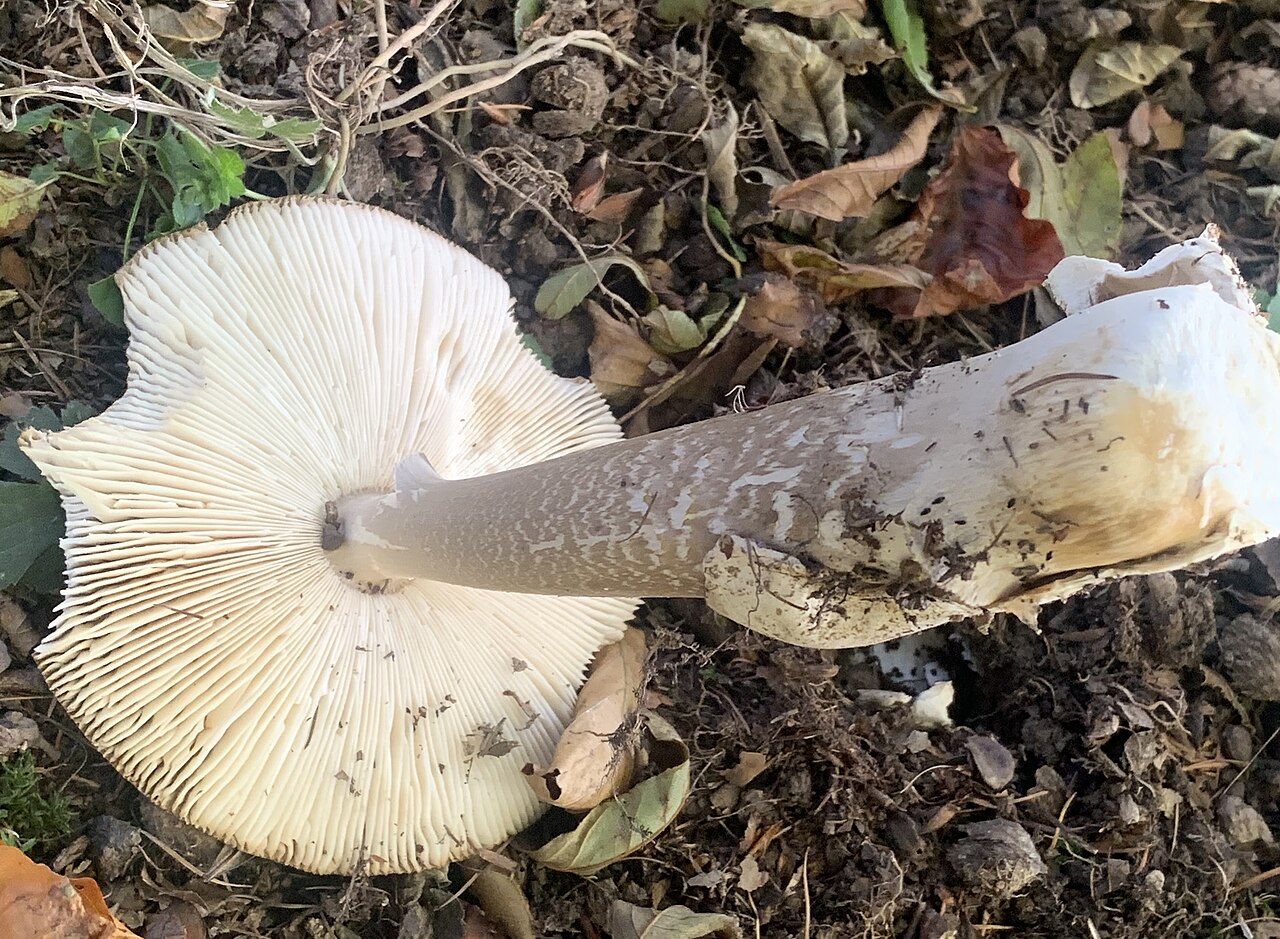
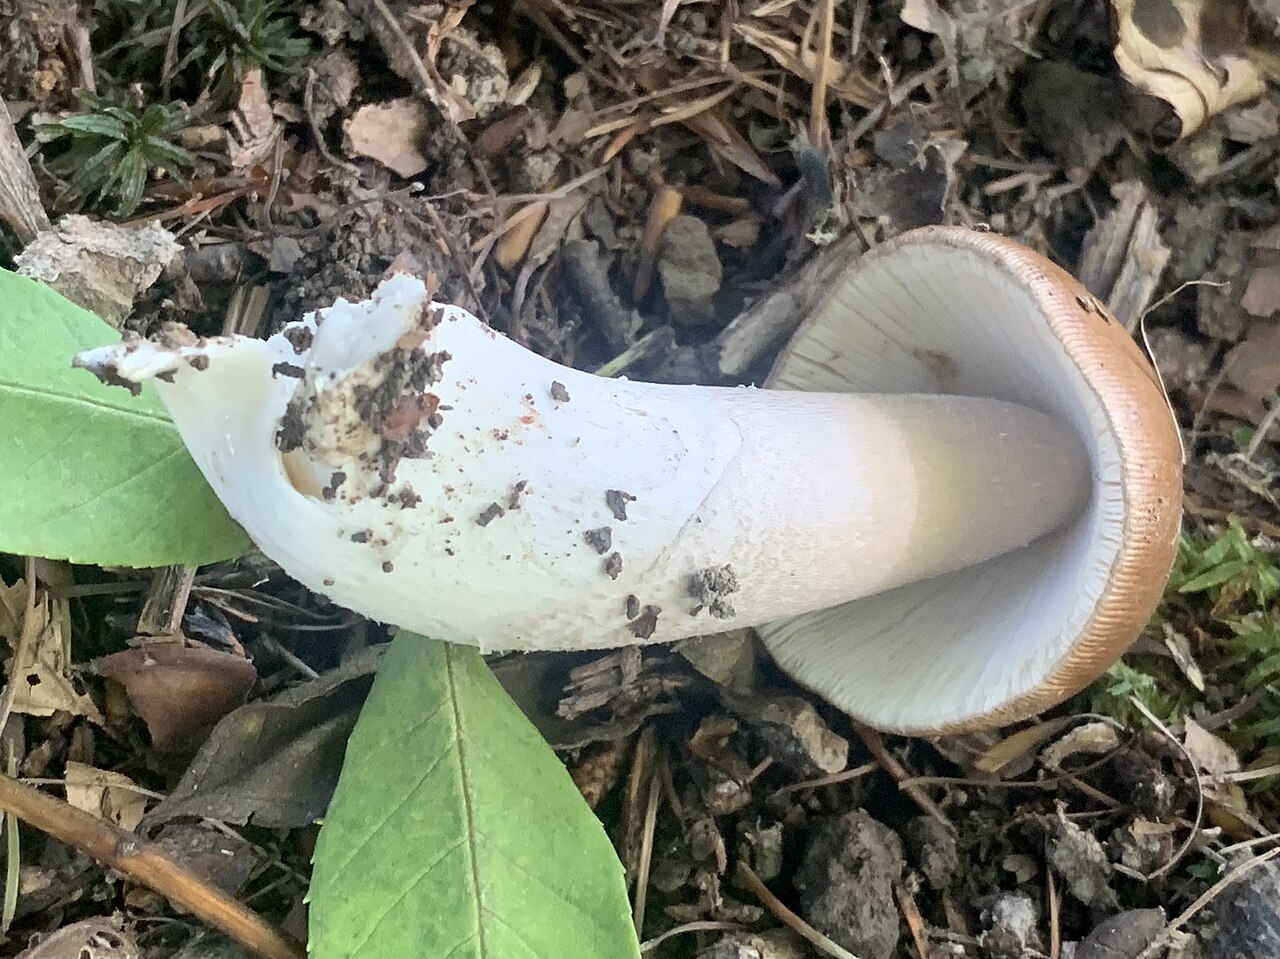
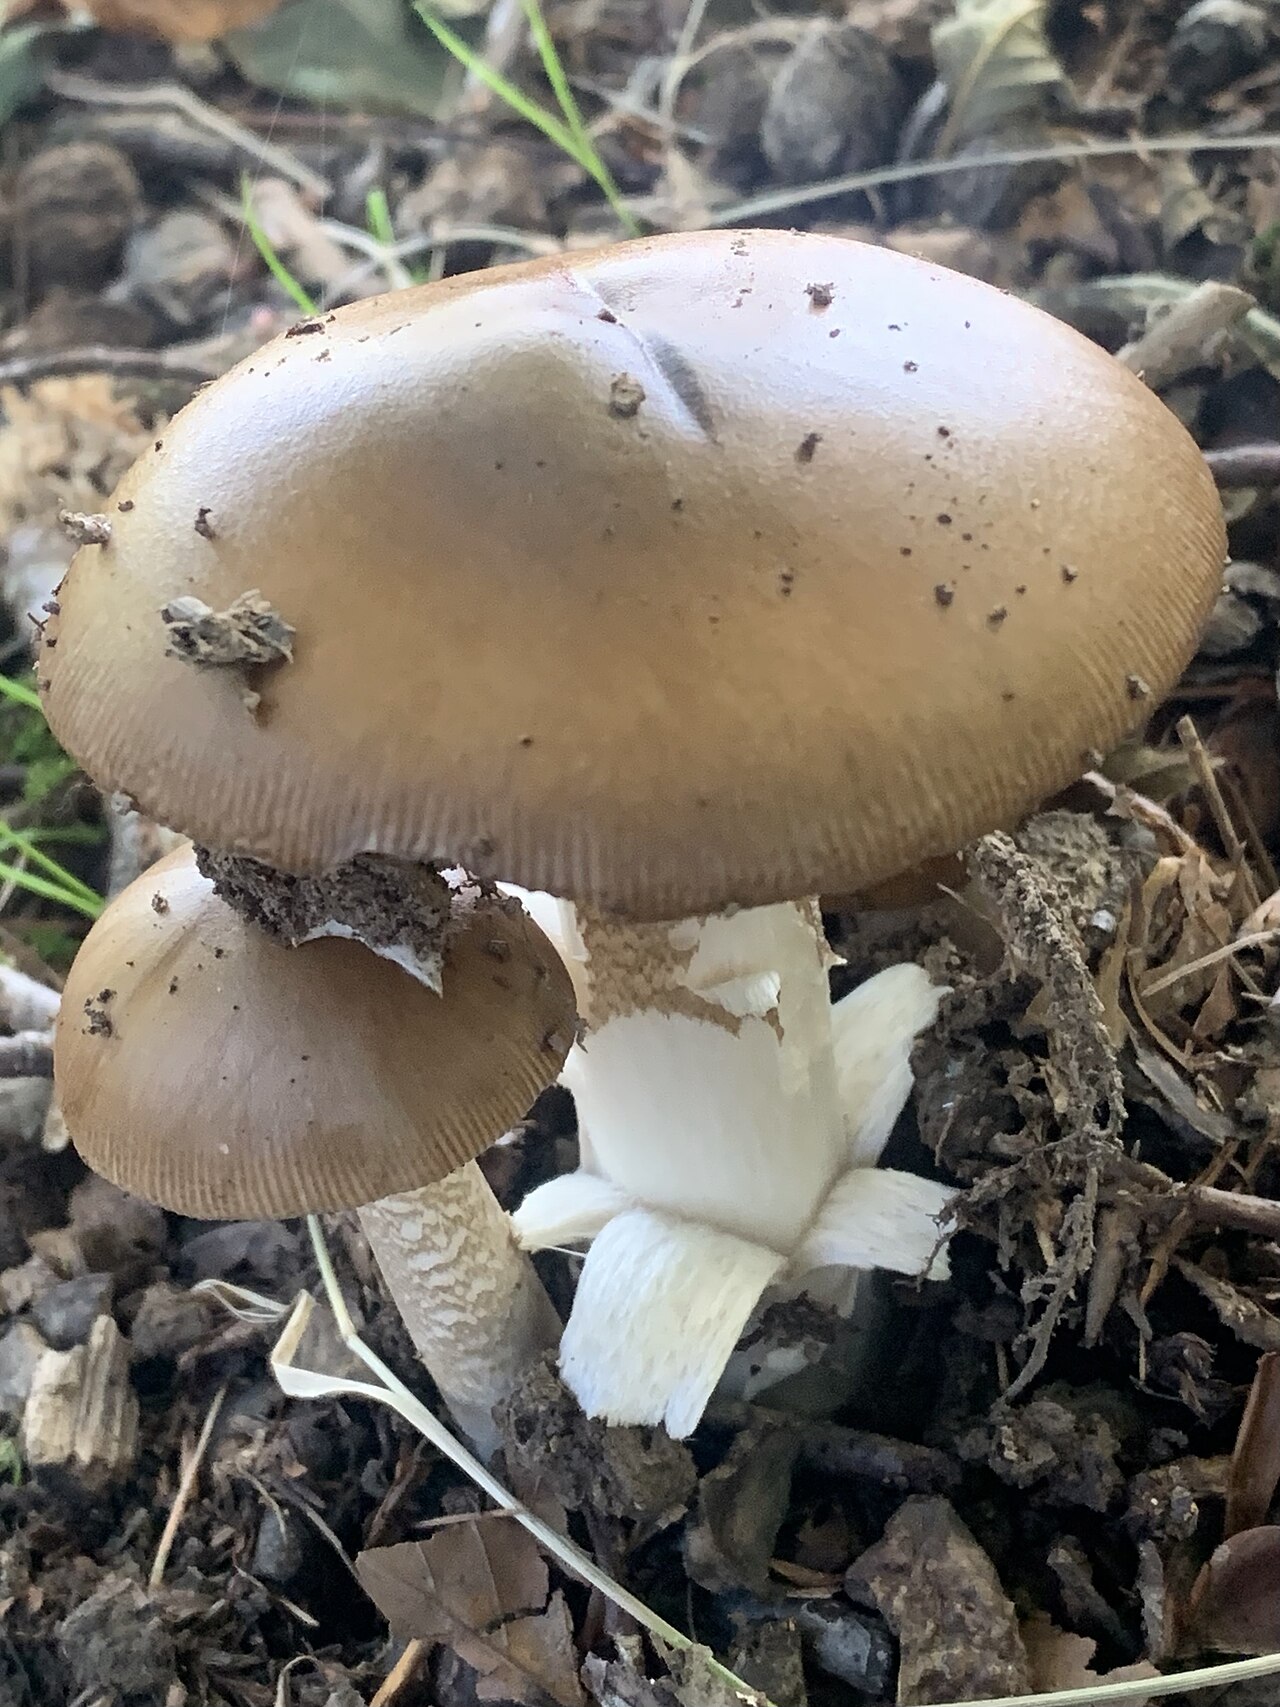
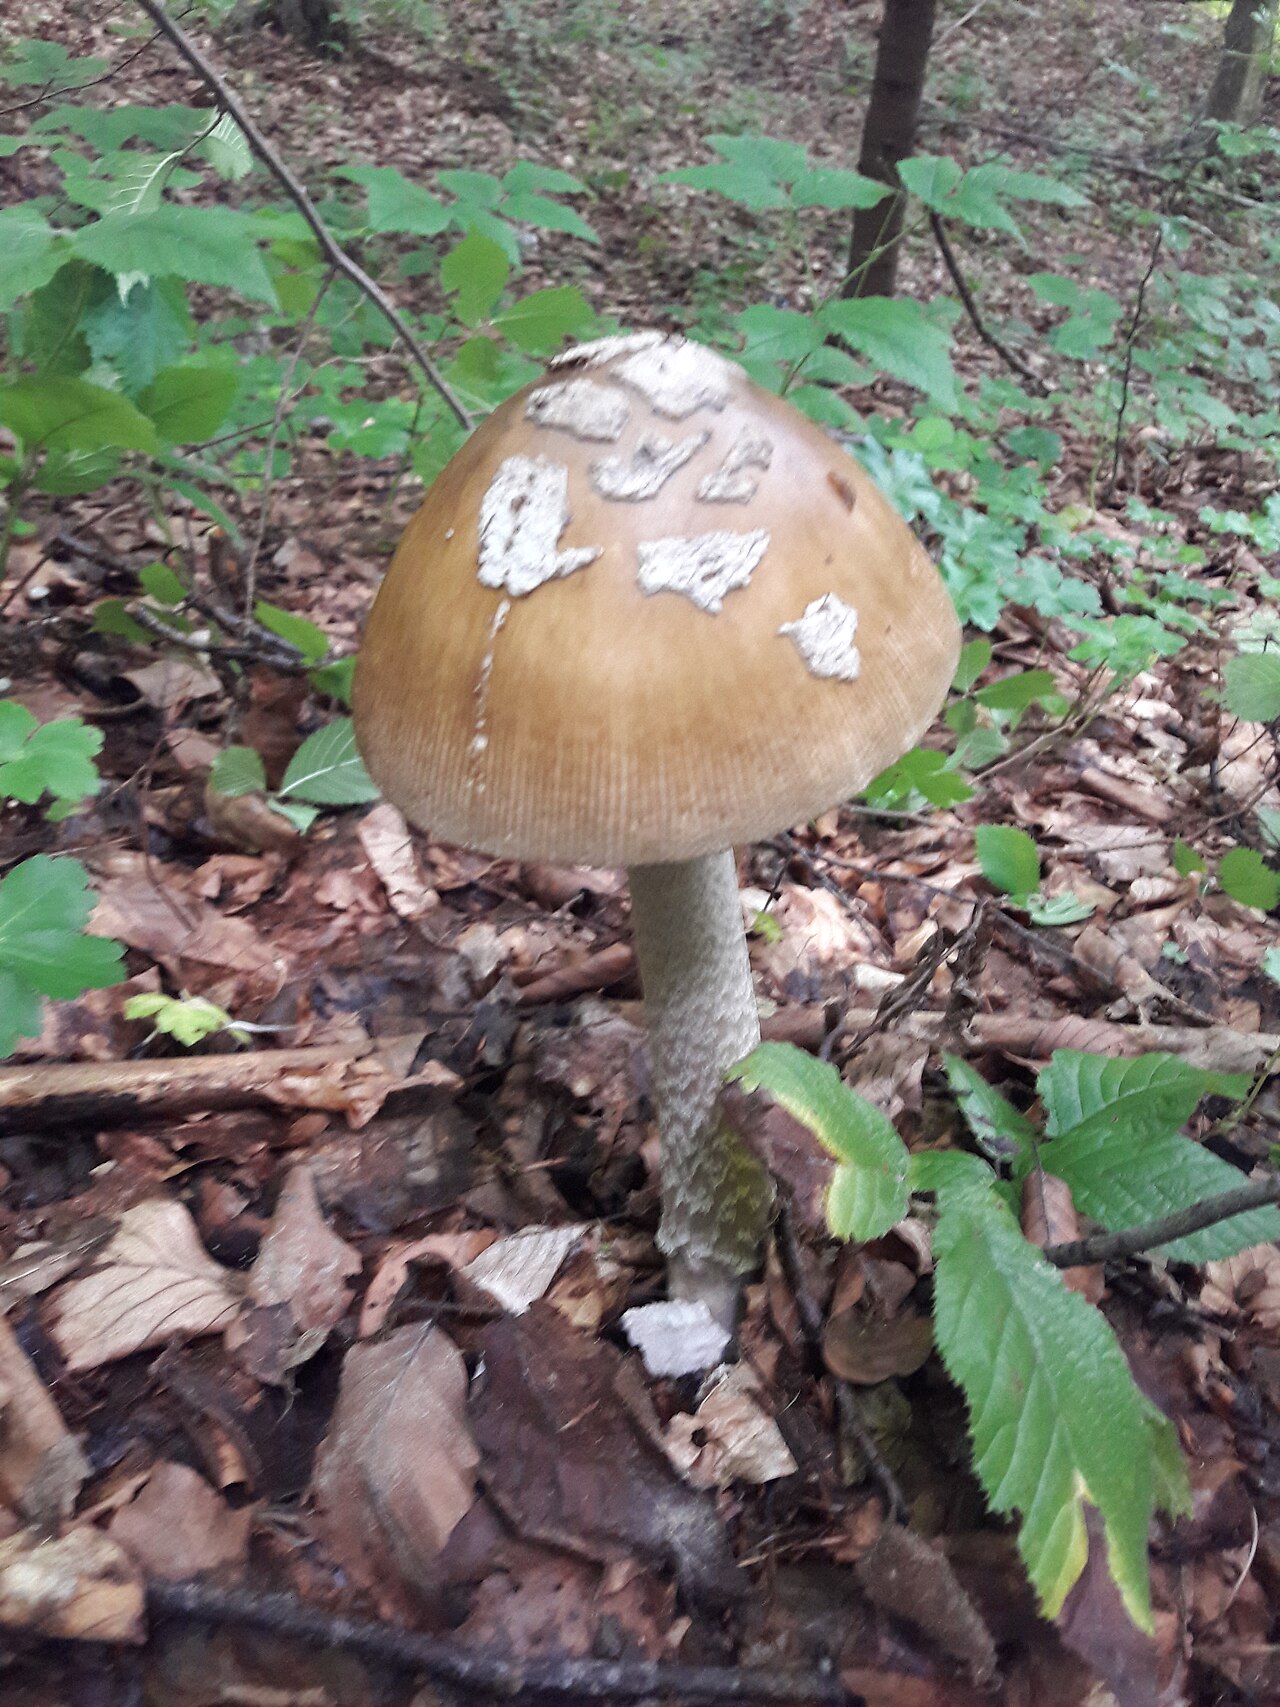
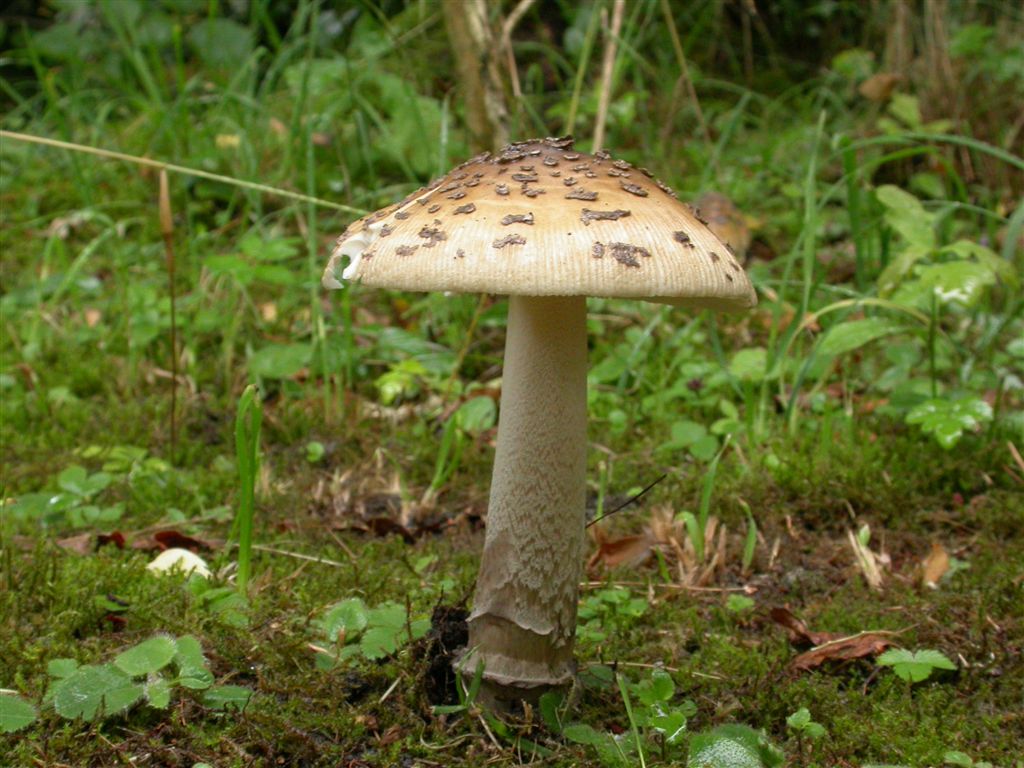
Amanita ceciliae, відомий як мухомор Цецилії, — великий представник секції поплавків родини мухоморових. Характеризується відсутністю кільця, жовтувато-коричневою або вохристою шапкою з темно-сірими повстяними клаптями загального покривала та крихкою піхвою, яка розпадається на зони навколо основи ніжки. Є умовно-їстівним видом широколистяних лісів.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
Шапинка
- Форма шапинки
- Форма шапинки: яйцеподібний.
Форма шапинки: плоский.
у молодих плодових тіл: Форма шапинки: яйцеподібний.
у зрілих плодових тіл: Форма шапинки: напівкулястий.
у зрілих плодових тіл: Форма шапинки: дзвоникоподібний.
у зрілих плодових тіл: Форма шапинки: опуклий.
у зрілих плодових тіл: Форма шапинки: плоский.
Форма шапинки: опуклий. - Блиск поверхні шапинки
- у сухому стані: Блиск поверхні шапинки: матовий.
- Клейкість і слизистість шапинки
- у мокрому стані: Клейкість і слизистість шапинки: липкий.
- Колір шапинки
- Колір шапинки: сіро-коричневий.
Колір шапинки: оливково-коричневий.
Колір шапинки: червоно-коричневий.
Колір шапинки: жовто-коричневою.
Колір шапинки: сіруватий.
Колір шапинки: жовтий.
Колір шапинки: палевий.
Колір шапинки: оливковою.
Колір шапинки: каштановий. - Положення краю
- у старих плодових тіл: Положення краю: відігнутий догори.
Положення краю: підгорнутий усередину. - Рельєф поверхні краю шапинки
- Рельєф поверхні краю шапинки: борознистий.
- Діаметр шапинки
- Діаметр шапинки становить 50–200 mm.
- Протяжність рубчастості краю шапинки
- Протяжність рубчастості краю шапинки: 0,25 (відносно радіуса шапинки).
Низ шапинки
- Тип гіменофора
- Тип гіменофора: пластинки.
Пластинки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (пластинки).
Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
- Ширина приростання гіменофора
- Ширина приростання гіменофора: вузько прирослий (пластинки).
- Загальний профіль пластинки
- Загальний профіль пластинки: рівномірно вузька (пластинки).
- Колір гіменофора
- Колір гіменофора: сірий.
Колір гіменофора: білувате.
Колір гіменофора: кремово-білий. - Розгалуження пластинок
- Розгалуження пластинок: роздвоєні.
- Макроскопічна будова вільного краю пластинок
- Макроскопічна будова вільного краю пластинок: городчастий і пластівчасте.
- Природний колір краю пластинки
- Природний колір краю пластинки: чорнуватий.
- Відстань між пластинками
- Відстань між пластинками: близько розташовані.
Відстань між пластинками: близько розташовані.
Відстань між пластинками: густо розташовані. - Товщина пластинок
- Товщина пластинок: товстий.
- Наявність коротких пластинок
- Наявність коротких пластинок: наявний.
Ніжка та основа
- Форма ніжки
- Форма ніжки: циліндричний.
- Колір ніжки
- у верхній частині ніжки: Колір ніжки: білий.
у середній частині ніжки: Колір ніжки: коричнюватий.
у нижній частині ніжки: Колір ніжки: коричнюватий.
Колір ніжки: білий.
Колір ніжки: сіро-коричневий. - Покрив поверхні ніжки
- Покрив поверхні ніжки: пластівчаста.
Покрив поверхні ніжки: луската.
у верхній частині ніжки: Покрив поверхні ніжки: борошнистий.
у верхній частині ніжки: Покрив поверхні ніжки: шовковиста.
у нижній частині ніжки: Покрив поверхні ніжки: луската. - Візерунок поверхні ніжки
- Візерунок поверхні ніжки: зигзагоподібний.
- Колір орнаментації ніжки
- Колір орнаментації ніжки: білувате.
- Внутрішня будова ніжки
- Внутрішня будова ніжки: суцільний.
Внутрішня будова ніжки: порожнистий. - Консистенція ніжки
- Консистенція ніжки: крихкий.
- Довжина ніжки
- Довжина ніжки: 80–250 mm.
- Діаметр ніжки
- Діаметр ніжки: 10–40 mm.
- Піхва
- Піхва: наявний.
Кільце
- Наявність кільця
- Наявність кільця: без кільця.
Бульба
- Наявність бульби при основі ніжки
- Наявність бульби при основі ніжки: відсутній.
Покривало біля основи
- Будова покривала біля основи ніжки
- Будова покривала біля основи ніжки: смуги.
Будова покривала біля основи ніжки: смуги.
Будова покривала біля основи ніжки: мішкоподібна.
- Стійкість піхви та покривала в основі до пошкодження
- Стійкість піхви та покривала в основі до пошкодження: легко пошкоджується (елемент покривала біля основи ніжки: смуги).
- Стійкість м’якуша ніжки до перелому або розриву
- Стійкість м’якуша ніжки до перелому або розриву: крихкий.
- Забарвлення піхви та покривала в основі ніжки
- Забарвлення піхви та покривала в основі ніжки: білий (елемент покривала біля основи ніжки: вольва).
М'якуш
- Колір м’якуша
- Колір м’якуша: білий.
- Смак м’якуша
- Смак м’якуша: солодкий.
- Стійкість м’якуша до перелому або розриву
- Стійкість м’якуша до перелому або розриву: крихкий.
- Запах м’якуша
- Запах м’якуша: невиразний (м’якуш).
Запах м’якуша: слабкий.
Де і коли росте
- Оселище
- Оселище: листяний ліс.
Оселище: хвойний ліс.
Оселище: мішаний ліс.
Оселище: парк.
Оселище: хвойний ліс, листяний ліс або мішаний ліс. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці.
Характер росту плодових тіл: розсіяні групи.
Характер росту плодових тіл: невеликими групами. - Частота трапляння
- Частота трапляння: нечастий.
- Період плодоношення
- Плодові тіла з’являються з червня до жовтня.
- Територія поширення
- Територія поширення: підтверджено.
Їстівність і кулінарія
- Їстівність
- Їстівний
- Необхідна обробка
- Потребує обробки
- Споживання в сирому вигляді
- У сирому вигляді отруйний
Право
- Охорона
- У Польщі вид не підлягає видовій охороні.
- Торгівля
- У Польщі вид не дозволено для торгівлі чи виробництва грибної продукції.
З чим можна сплутати
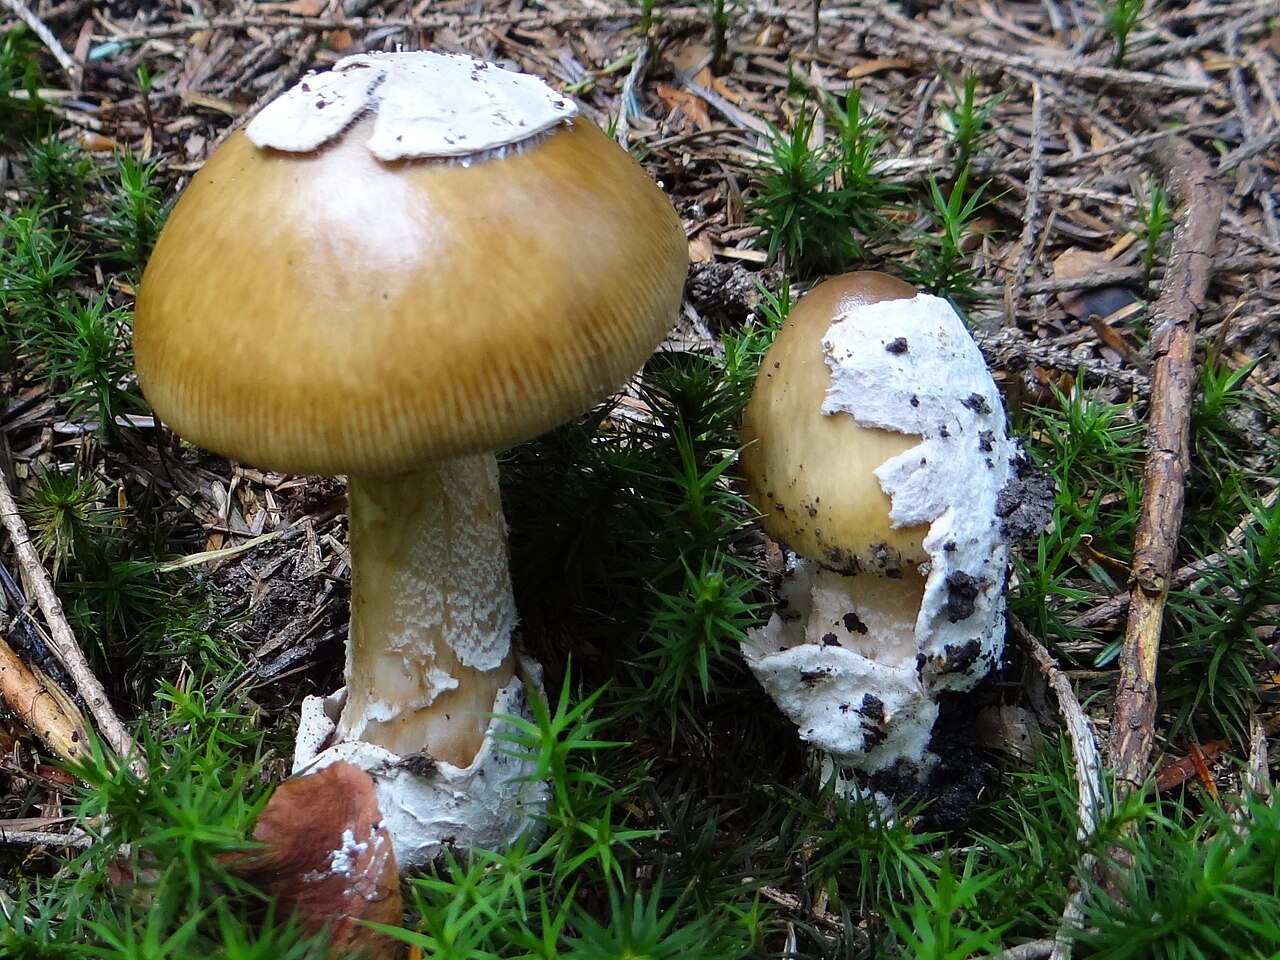
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Джерело фотографії · CC BY-SA 3.0Amanita submembranacea
Найважливіші відмінності
Мухомор бронзово-оливковий (Amanita submembranacea) відрізняється наявністю великих фрагментів покривала на шапинці та сіріючою зсередини піхвою, ростучи переважно в гірських лісах на кислих ґрунтах.
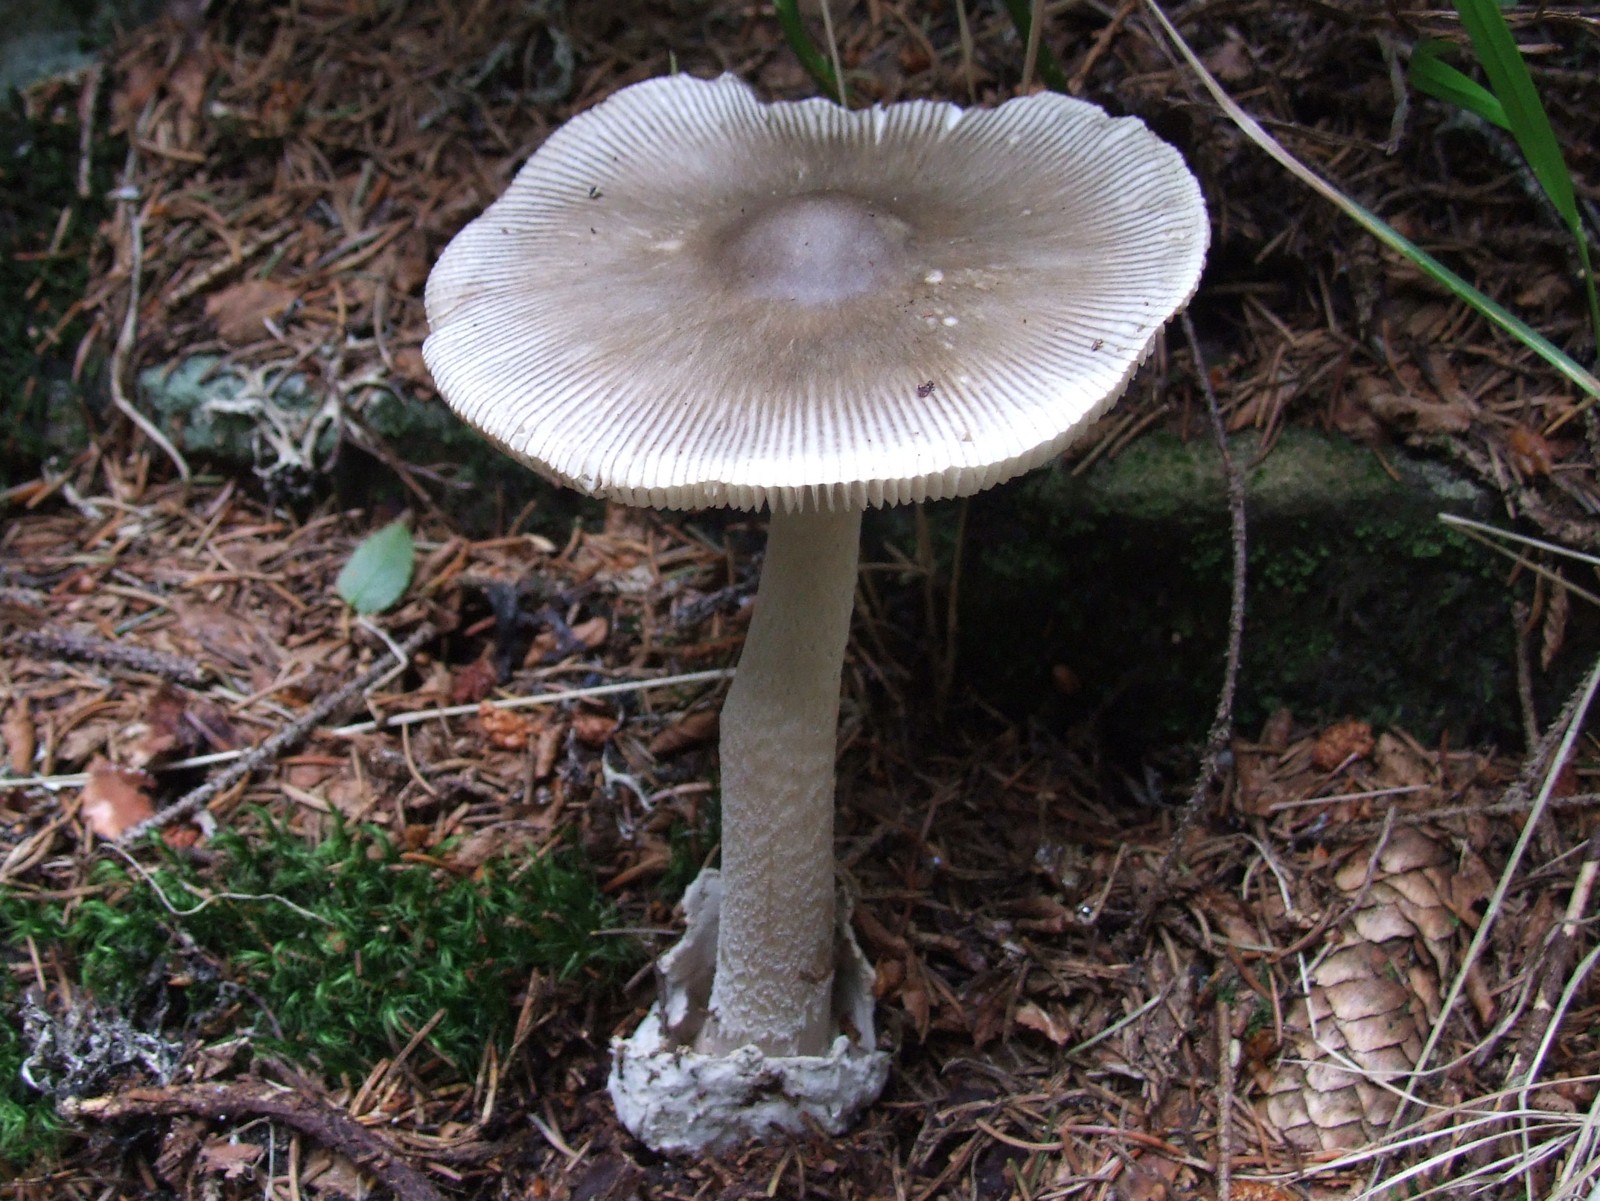
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Джерело фотографії · CC BY-SA 4.0Amanita vaginata
Найважливіші відмінності
Мухомор сірий (Amanita vaginata) вирізняється гладенькою білою ніжкою, позбавленою темних лусок і зигзагоподібного візерунка.
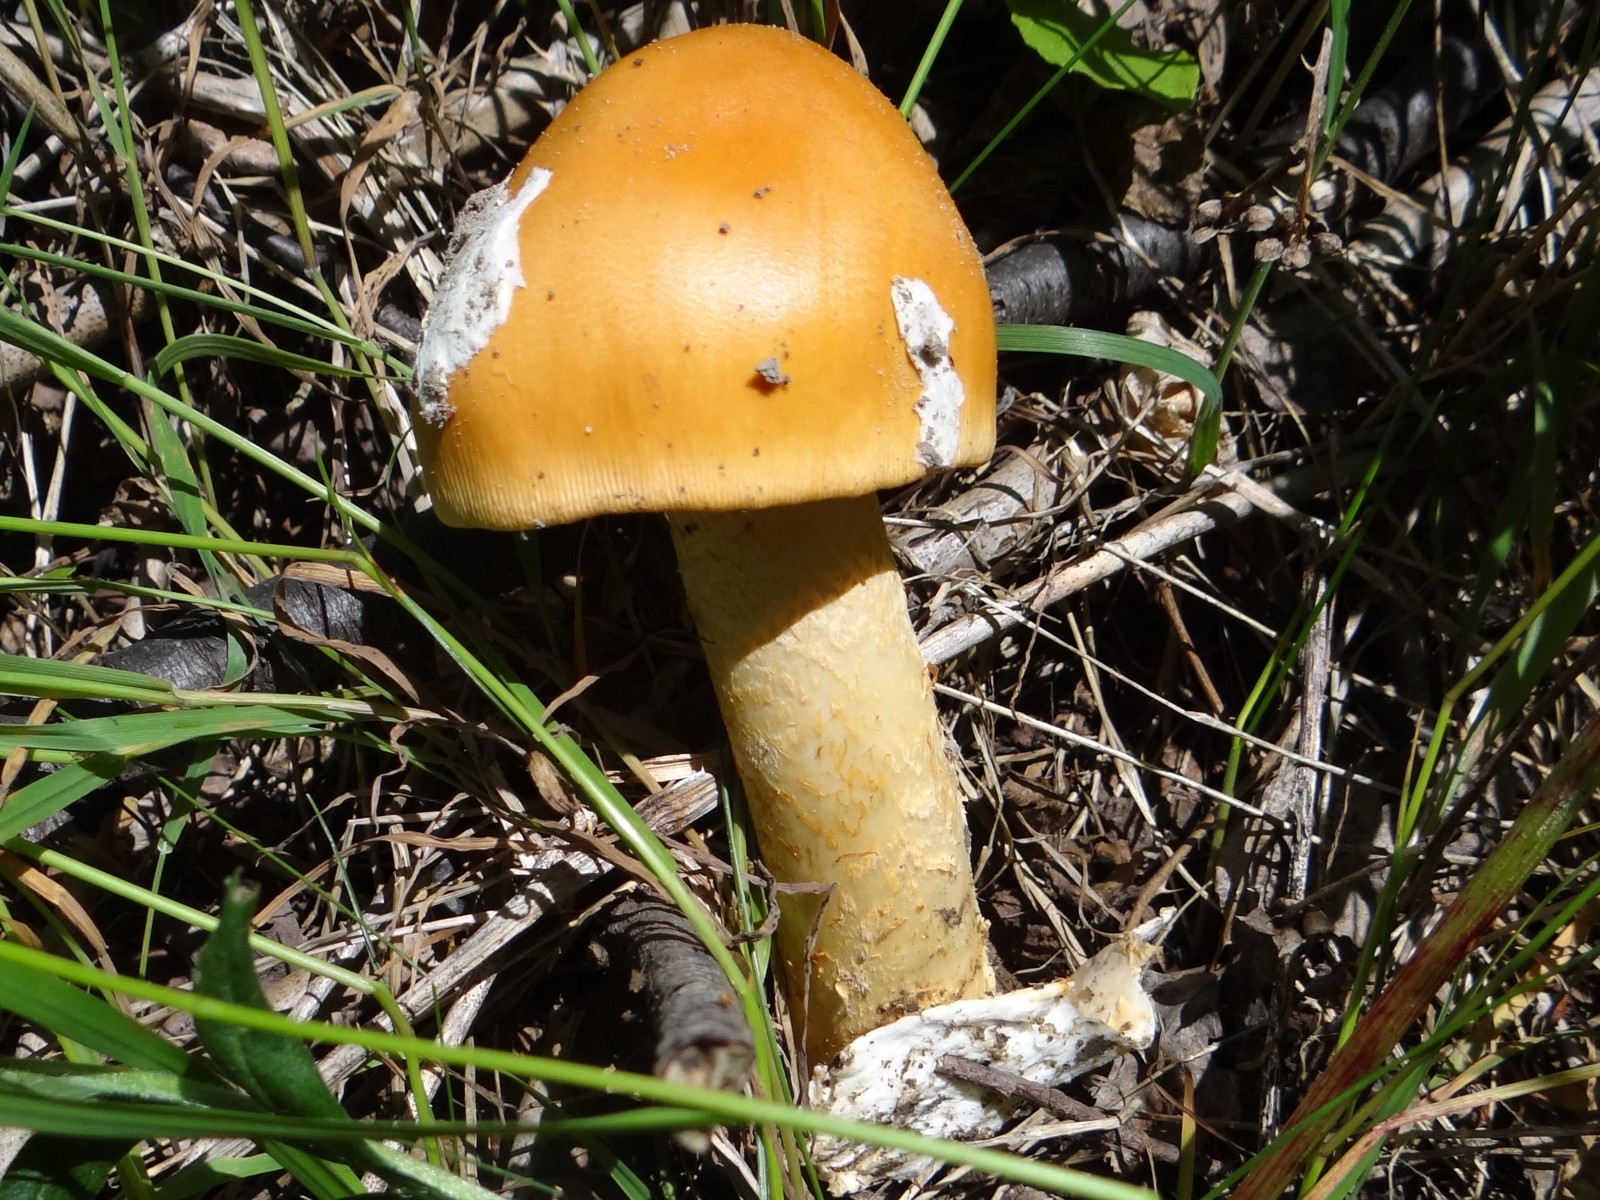
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Джерело фотографії · CC BY-SA 4.0Amanita crocea
Найважливіші відмінності
Мухомор жовтуватий (Amanita crocea) має шапинку яскраво-шафранову до помаранчево-жовтої та піхву, забарвлену всередині в помаранчевий колір.
Amanita pantherina
Найважливіші відмінності
Вид можна сплутати з сильноотруйним мухомором пантерним (Amanita pantherina). Мухомор пантерний має виразне кільце на ніжці та бульбу з валиками біля основи, однак під дощем або у старих екземплярів кільце може стертися й відпасти.
Amanita friabilis
Найважливіші відмінності
Amanita friabilis значно менший (шапинка до 6 см), має дрібніші спори й росте виключно під вільхами.
Amanita fulva
Найважливіші відмінності
Мухомор рудо-бурий (Amanita fulva) має шапинку в лисячо-рудих і палево-помаранчевих відтінках, а також гладку ніжку та піхву, що іржавіє.
FAQ
На честь кого отримав назву Amanita ceciliae?
Він названий мікологом Майлзом Берклі на честь його дружини Цецилії, яка ілюструвала його наукові роботи.
Чи їстівний цей гриб у сирому вигляді?
Ні, у сирому вигляді гриб отруйний, тому вимагає обов'язкової попередньої термічної обробки.
Чи має Amanita ceciliae кільце?
Ні, цей вид належить до безкільцевих мухоморів підроду Vaginatae і не утворює манжети.
З якими деревами найчастіше утворює мікоризу?
Гриб віддає перевагу широколистяним породам, зокрема дубу, буку, грабу та ліщині.
Який колір мають клапті на шапці гриба?
Залишки загального покривала на шапці зазвичай попелясто-сірі або темно-сірі, повстяні за структурою.
У який сезон росте Amanita ceciliae?
Плодові тіла з'являються з середини літа й продовжують зростати до кінця жовтня.
Яка консистенція м'якоті цього виду?
М'якоть дуже крихка, ніжна, соковита, білого кольору, під шкіркою шапки трохи жовтувата.
Чи придатний гриб для сушіння?
Через сильну крихкість сушіння використовується рідко, частіше практикується відварювання.
Як виглядає піхва біля основи ніжки?
Піхва слабка і ламка, вона часто розпадається на кілька нерівних сірих зон чи кілець на ніжці.
Який відтінок дає гриб під час фарбування вовни?
Екстракти гриба надають натуральним вовняним ниткам м'які бежеві, вохристо-сірі та оливкові тони.
Любитель
Назви та історія
- Obowiązująca nazwa krajowa
- Muchomor złotawy
- Obowiązująca nazwa taksonomiczna
- Amanita ceciliae (Berk. & Broome) Bas
- Pozostałe nazwy
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: білий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: кулястий. Форма спори: кулястий. Форма спори: майже кулястий. Форма спори: кулястий. Форма спори: кулястий (майже). Форма спори: кулястий. Форма спори: кулястий (майже).
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 9,5–25 µm, ширина 8,6–25 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Екологія та поширення
- Вапнистість ґрунту
- Вапнистість ґрунту: вапняний.
- Листяні дерева в оточенні
- Листяні дерева в оточенні: бук.
Листяні дерева в оточенні: граб.
Листяні дерева в оточенні: дуб. - Хвойні дерева в оточенні
- Хвойні дерева в оточенні: ялиця.
- Тип живлення
- Тип живлення: Мікоризний.
Некулінарні застосування
Гриб не має практичного медичного чи індустріального застосування у сучасному господарстві.
- Текстильне фарбування: у традиційному ремісництві зрілі плодові тіла зрідка застосовувалися майстрами для фарбування вовняної пряжі у світлі охристо-пісочні, жовто-сірі та оливкові відтінки.
- Експозиційно-освітня роль: завдяки великим розмірам і характерним пластівцям на шапці вид традиційно слугує наочним екземпляром на мікологічних виставках і семінарах для демонстрації варіативності залишків вольви.
- Етнографічні матеріали: у деяких селах Центральної Європи сухі порожні ніжки застосовувалися дітьми для виготовлення простих іграшкових дудочок.
Історія та культура
Вид був описаний британським мікологом Майлзом Джозефом Берклі та названий на честь його дружини Цецилії Берклі, яка допомагала вченому ілюструвати та документувати ботанічні й мікологічні зразки.
- Фольклорний пласт: у народних назвах багатьох європейських країн за характерний лускатий вигляд гриб порівнювали зі шкірою змії або клаптями замші.
- Символіка: в англійській натуралістичній культурі XIX століття цей гриб став символом наукової співпраці та жіночого внеску у розвиток польової ботаніки.
- Історичні згадки: докладні описи виду регулярно публікувалися у вікторіанських довідниках як приклад величних безкільцевих мухоморів.
Їстівність і безпека
Amanita ceciliae є умовно-їстівним грибом, безпечне вживання якого можливе виключно після належної кулінарної обробки. Сира м'якоть містить термолабільні токсичні речовини, що провокують серйозні розлади травної системи.
- Термічна обробка: обов'язкове попереднє тривале відварювання з обов'язковим видаленням усієї рідини перед подальшим використанням.
- Смакові характеристики: м'якоть має солодкуватий приємний аромат, ніжну текстуру й приємний класичний лісовий смак.
- Кулінарна культура: у кулінарії Франції, Іспанії та Італії цей вид високо цінується серед поціновувачів дикорослих грибів, проте його крихкість ускладнює транспортування та промислове постачання на ринки.
Оселище та поширення
Amanita ceciliae поширений у лісових екосистемах Європи та помірної Азії; повідомлення про широке поширення виду в Північній Америці ґрунтуються на старих записах у широкому розумінні й здебільшого стосуються інших споріднених таксонів, хоча абсолютну відсутність виду на цьому континенті також не доведено. Гриб віддає перевагу теплим широколистяним і мішаним лісовим насадженням із багатими на гумус або кальцій ґрунтами.
- Субстрат: добре розвинений поживний шар ґрунту, багатий вапняковий суглинок або лісова підстилка.
- Мікоризна специфіка: формує симбіоз переважно з дубом, буком, грабом, ліщиною, рідше трапляється під березами або старими хвойними деревами.
- Сезон росту: період плодоношення розпочинається з кінця червня або липня та триває до перших заморозків у жовтні.
- Регіональний розподіл: на півдні ареалу поширений у середземноморських лісах, на півночі — приурочений до теплих дібров і південних схилів горбистих височин.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, оцінка автора, без дослідження клінічної безпеки
- Споживання в сирому вигляді
- Отруйний
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Список Amanita inaurata*: токсичні сирі або недоварені; навчальне джерело, не аналіз токсину виду
- Їстівність
- Отруйний
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Список Amanita inaurata*: токсичні сирі або недоварені; навчальне джерело, не аналіз токсину виду
- Необхідна обробка
- Потребує обробки
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Наукові назви та таксономія
- Чинна наукова назва
Amanita ceciliae (Berk. & Broome) Bas
Наукові назви та таксономія
Amanita ceciliae (Berk. & Broome) Bas належить до родини мухоморових (Amanitaceae) і секції Vaginatae. Був описаний у 1854 році Берклі та Брумом під базіонімом Agaricus ceciliae, а до роду Amanita його переніс Корнеліс Бас у 80-х роках XX століття.
Наукові назви та таксономія
У давніших мікологічних працях цей вид траплявся, зокрема, під назвами Amanita inaurata, Amanitopsis inaurata та Amanitopsis ceciliae. Назва Amanita strangulata, своєю чергою, вживалася багатьма авторами в широкому, неоднозначному значенні (sensu auct. mult.).
Історичний обсяг назв і трактувань виду
В англомовній літературі побутує назва Snakeskin Grisette, а в німецькій — Riesen-Scheidenstreifling.
Межі таксона та обмеження визначення
Таксономічні дослідження показали, що частина північноамериканських грибів, які раніше описувалися як A. ceciliae або A. inaurata, належить до окремих видів, таких як Amanita rhacopus та Amanita variicolor. Сучасне розуміння A. ceciliae стосується європейських популяцій.
Межі таксона та обмеження визначення
У філогенетичних дослідженнях секції Vaginatae підтверджено позицію європейського таксона A. ceciliae (представленого, зокрема, зборами з Угорщини) за допомогою аналізу послідовностей чотирьох локусів: ITS, LSU, RPB1 та TEF1-α.
- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[13] [10] [14] [3]
Екологія та поширення
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
- Довжина стеригми базидії
- Довжина стеригми базидії: до 8,4 µm. [34]
- Кількість спор на базидії
- Кількість спор на базидії становить 4. [36]
Кількість спор на базидії становить 2. [36]
Кількість спор на базидії становить 2. [34]
Кількість спор на базидії становить 4. [34] - Форма базидії
- Форма базидії: булавоподібний. [36]
- Ширина стеригми
- Ширина стеригми: до 3,1 µm. [34]
- Пряжки
- Пряжки: не спостерігали. [36]
Інші лабораторні ознаки
- Фертильність краю пластинок
- Фертильність краю пластинок: стерильна. [36]
- Вимірювання субгіменіальної зони
- Вимірювання субгіменіальної зони: 15–35 µm (вимірювання wst-near). [34]
Вимірювання субгіменіальної зони: 50–70 µm (вимірювання wst-far). [34] - Розташування клітин загального покривала
- Розташування клітин загального покривала: кінцеві (на шапинці). [34]
Розташування клітин загального покривала: короткими рядами (на шапинці). [34]
Шкірка шапинки
- Оптичний вигляд гіф шкірки шапинки
- Оптичний вигляд гіф шкірки шапинки: гіаліновий (верхній шар шкірки шапинки). [36]
- Розташування гіф шкірки шапинки
- Розташування гіф шкірки шапинки: майже радіальне. [34]
- Форма елементів шкірки шапинки
- Форма елементів шкірки шапинки: циліндричний. [36]
Форма елементів шкірки шапинки: циліндричний. [36] - Ширина елементів шкірки шапинки
- Ширина елементів шкірки шапинки: 1,1–7,7 µm. [34]
Ширина елементів шкірки шапинки: 0,8–3 µm. [36]
Ширина елементів шкірки шапинки: 2,5–4 µm. [36] - Розгалуження гіфи шкірки
- Розгалуження гіфи шкірки: розгалужений. [34]
- Занурення гіф шкірки в драглисту речовину
- Занурення гіф шкірки в драглисту речовину: наявний. [36]
Занурення гіф шкірки в драглисту речовину: наявний (лише біля поверхні, у поверхневому шарі шкірки шапинки). [34]
Занурення гіф шкірки в драглисту речовину: без желатинізації (у нижньому шарі шкірки шапинки). [34]
Занурення гіф шкірки в драглисту речовину: наявний (лише біля поверхні, у поверхневому шарі шкірки шапинки, у зрілого плодового тіла). [34] - Колір пігменту шкірки
- Колір пігменту шкірки: коричневий. [34]
Реакції з реактивами
Спори
- Середнє відношення довжини спори до її ширини
- Середнє відношення довжини спори до її ширини: 1,04 (середнє значення). [32]
- Профіль адаксіального боку базидіоспори
- Профіль адаксіального боку базидіоспори: сплощений. [34]
- Наявність виросту рубчика базидіоспори
- Наявність виросту рубчика базидіоспори: наявний. [34]
- Положення виростка рубчика базидіоспори
- Положення виростка рубчика базидіоспори: майже бічний. [34]
- Форма виростка рубчика базидіоспори
- Форма виростка рубчика базидіоспори: циліндричний. [34]
- Колір спор під мікроскопом
- Колір спор під мікроскопом: гіаліновий. [36]
Колір спор під мікроскопом: гіаліновий. [34] - Довжина спори
- Довжина спори: 9,7–15,4 µm. [36]
Довжина спори: 10,5–14 µm. [10]
Довжина спори: 9,5–25 µm. [34] - Наявність ліпідних тілець
- Наявність ліпідних тілець: наявний. [36]
- Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 0,94–1,14. [36]
Відношення довжини спори до її ширини: 1–1,36. [34] - Форма спори
- Форма спори: кулястий. [10]
Форма спори: кулястий. [9]
Форма спори: майже кулястий. [9]
Форма спори: кулястий. [36]
Форма спори: кулястий (майже). [36]
Форма спори: кулястий. [34]
Форма спори: кулястий (майже). [34] - Об'єм спори
- Об'єм спори: 410–2030 µm³. [36]
- Товщина стінки спори
- Товщина стінки спори: тонкостінний. [34]
Трама гіменофора
Матеріал і методи досліджень
Опис ознак — джерело та обсяг
Матеріал: Атласний опис м'якуша K.Tejkala/ČMS; запах nevýrazný.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Опис автора без номера дослідженого зразка; невиразний запах не ототожнено з хімічною відсутністю запашних речовин.
Мікроскопічні дані — джерело та обмеження
Матеріал: Середнє Q спор вибірки з 4813,100 вимірювань автора M.Zugny; той самий матеріал, що й для окремого мікроскопічного дослідження, не новий дослід.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Середнє наведено безпосередньо автором; незалежні межі довжини та ширини не розділялися.
Дослідження складу та активності — Akata та ін. (2012)
Матеріал: Плодові тіла з Анатолії, визначені як Amanita ceciliae, AKATA 3037,850 м; метанольний екстракт висушеного матеріалу. Тест DPPH,517 нм,30 хв у темряві; три повтори.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Результат in vitro, не підтверджене лікування або безпечна доза їжі. У цій роботі відсутня молекулярна верифікація визначення; не польський матеріал. Анотація містить суперечливе приписування 96,16% при 4,51 мг/мл; безпосередньо зчитаний рядок дає 95,35 ± 0,10% при 4,65 мг/мл.
Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[10]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[11]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[6]- Результати, наведені в джерелах — Кількість спор на базидії
- Liczba zarodników na jednej podstawce wynosi 2. [36] [34]
Liczba zarodników na jednej podstawce wynosi 4. [36] [34] - Результати, наведені в джерелах — Ширина гіфи загального покривала
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [34]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [36]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [36]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [34]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [34]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [34]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [34]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [34]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [36]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [36]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [36]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [36]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [36]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [36]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [36]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [36]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [36]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [36]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [36]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [36]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [34]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [34]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [34]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [10]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Назви та межі виду
Польська назва: Muchomor złotawy є назвою, що вживається в польському списку Воєводи 2003. Автор посилається на Боровську та Скірґелло у Ґарнвайднері 1993; раніше видання не опрацьовувалося. Список зберігає також історичну назву Доманського 1955 a. Шість назв з атласу Ekologia.pl записано як альтернативні з атласним походженням. Це не робить їх офіційними назвами і не підтверджує давніх невирішених міток запису.
Первинні публікації: Берклі та Брум описали Agaricus ceciliae у 1854 р., позиція 663, с. 396–397. Бас у 1984 р., с. 192, після перевірки типового матеріалу в К'ю створив комбінацію Amanita ceciliae. Рік 1984 зчитано в самій публікації; попередня розбіжність 1983/1984 залишається в історії. Бас відокремив помилкові пізніші вживання назви strangulatus від первинного опису Fries 1838, що стосується іншого, невирішеного виду. Не додано справжній Agaricus strangulatus як простий синонім.
Межі таксона та матеріал за межами Європи: Опрацювання стосується європейського трактування Amanita ceciliae, зокрема окремо задокументованого угорського зразка DB-2018-07-08-5/AD22. Це не означає повторного визначення всіх зразків з атласів чи ототожнення мексиканського, гватемальського матеріалу aff. ceciliae або A. sororcula з європейським матеріалом. Ламберт та співавтори виділили з колишніх північноамериканських визначень A. rhacopus та A. variicolor на основі морфології, типів та ITS. Обмеження стосується також перенесення фотографій, повідомлень про отруєння та даних про вживання в їжу.
Польське поширення та плодоношення
Поширення та місяці: Воєвода наводить польські місцезнаходження зокрема з околиць Ельблонга, Великопольського НП, Кампіноса, Глогува, Дембовця, Аннополя, Баб'я-Ґури, П'єнін та Полісся, а також термін червень–жовтень. Це огляд літератури, а не новий моніторинг усієї Польщі. GRej містить подальші, явно визначені польські спостереження. Місяці внесено з польського списку; окремі дати зборів не перераховувалися на межі сезону.
Оселище та обачність інтерпретації: Польський список зазначає ґрунт у листяних, хвойних і мішаних лісах, також під ялиною. Сноварський описує віддання переваги вапняковим ґрунтам і нечасті реєстрації. Наявність поруч із деревом не була перетворена на молекулярний доказ мікоризного зв'язку. Історична категорія регіональної загрози не є чинним національним правовим захистом. Закордонні місяці чи статуси червоних списків не замінюють польських даних.
Дослідження італійського збору 4813
Матеріал і метод: Збір від 19.08.2012 походить із букового лісу біля PratoRotondo, Терамо, 1460 м; зібрав його Bruno de Ruvo, визначив Marino Zugna. Макроопис складено за фотографіями. Сухий матеріал регідратували водою або 5%KOH; препарати переглядали у воді або 6%аміачному конго червоному. Мельцер слугував для оцінки амілоїдності. Виміряно 100 зрілих спор із негіменіальних частин у боковій проєкції; інші типи клітин щонайменше по 20 разів. Не приписано одне середовище всім вимірюванням.
Результати: Повні межі спор становлять 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, середнєQ 1,04, об'єм 410–2030 µm³. Вони кулясті до майже кулястих, гіалінові, неамілоїдні, з однією великою центральною олійною краплею. Базидії мають 38,63–68,53×10,39–16,33 µm, зазвичай 4, а рідко 2 спори. Пряжок не виявлено в досліджених тканинах. Центральні діапазони, середні та вихідні застереження збережено біля оригіналу.
Обмеження: Це власні спостереження автора, оприлюднені збирачем у блозі; ранішу версію forumAMB не опрацьовано. Зразок не є польським вимірюванням. Два шари шкірки мають окремі діапазони ширини гіф; з них не створювали єдиного безумовного діапазону. Відсутність спостережень маргінальних клітин не є доказом відсутності всіх цистид.
Ревізія європейських ексикатів
Матеріал і результат: Таллосс наводить 100 вимірювань із 5 плодових тіл та 4 зборів. Повні межі спор становлять 9,5–25×8,6–25 µm, при вужчих центральних діапазонах 10,3–14,9×9,5–14,3 µm; джерело чітко згадує нечисленні гігантські спори. Базидії 65–89×13,8–19,1 µm є 4-стеригмовими або рідко 2-стеригмовими. Не вказано середовище кожного вимірювання. Нотатки Баса про тип не перетворювали на незалежне власне дослідження Таллосса.
Детальні частини: Трама пластинок білатеральна. Звичайні гіфи 2,8–5,9 µm відрізнено від судинних 2,8–23 µm. Видовжені клітини основи субгіменію досягають 74×16,7 µm. Окремо описаний збір E.W.Brown, RET270-1, Уельс, 20.09.1994, має гіфи шкірки 1,1–7,7 µm і внутрішньоклітинний коричневий пігмент subpellis. Ці властивості не переносили безумовно на всі шари та колекції.
Що залишається в документації: Підбоковий циліндричний відросток рубчика, адаксіальне сплощення та тонка стінка відносяться до базидіоспори. Рідкісна широко еліпсоїдна форма вимагає відсутнього кваліфікатора частоти. Межі желатинізації, товщини шарів, різні форми та стінки клітин покривала зберігають окремі контексти; їх не замінювали довільним ступенем «сильний».
Молекулярні дані та джерельний матеріал
Європа: Varga та ін. (2024), таблиця 1, наводять власний угорський зразок DB-2018-07-08-5(AD22) з Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 і TEF1α PP273683. Французький JMM20180914, ITS MN490692, відсилає до Hanss і Moreau 2020; данський JV05-394, ITS UDB002315, позначений як неопублікований. Рядки не є трьома незалежними дослідженнями одного й того самого польського зразка. Правильна метрика праці — Mycological Progress 23, стаття 38; не 63.
Іран: Праця Resources of Iranian agarics(2022) наводить для A. ceciliae ITS OK299150 і LSU OK299170. У таблиці антиоксидантного потенціалу біля цього виду стоїть ND. Цю таблицю не розглядали як нове визначення активності екстракту й не підставляли іранські результати до польського сезону. Послідовності є ідентифікаторами, наведеними авторами; тут не проводилися власне завантаження та повторне вирівнювання послідовностей.
Їстівність і докази шкідливості
Оцінки та їхня основа: ČMS оцінює вид як їстівний із низькою кулінарною цінністю. Навчальний матеріал SFMU відносить назву Amanita inaurata до токсичних у сирому або недовареному вигляді грибів і позначає зірочкою гемолізини. Цей запис не містить специфічного аналізу токсину досліджуваного зразка, індивідуальної серії пацієнтів чи валідованого часу й температури обробки. Оцінки авторів записано з їхніми умовами; вони не є результатом клінічного дослідження.
Повідомлення з Монтани: Реєстр NAMA наводить один випадок у дорослого, позначений як Amanita inaurata, Монтана, початок 0,6 год, шлунково-кишкові симптоми, пітливість, ністагм і затуманений зір. Зведення не доводить ідентичності з європейським A. ceciliae і не містить для цього рядка повного індивідуального розслідування причинно-наслідкового зв'язку. Повідомлення не проігноровано, але з нього не виведено токсичність правильно визначеного польського матеріалу.
Обмеження огляду: У перевірених джерелах не отримано первинного, специфічного для європейського виду аналізу гемолізинів або повної клінічної серії, яка б розв'язувала питання безпеки. Це не є доказом неіснування таких досліджень. Не додано аматоксинів, мусцимолу чи гарантій знешкодження токсинів.
Склад і дослідження з екстрактом
Матеріал і методи: Akata та ін. (2012) досліджували анатолійські плодові тіла, визначені як A. ceciliae, AKATA 3037,850 m. Екстракт висушеного матеріалу готували метанолом. Виконано тест DPPH зі зчитуванням при 517 нм через 30 хв у темряві, три повтори. Білок визначали методом К'єльдаля, коефіцієнт 6,25. Верифікацію визначення за ДНК не наведено.
Зчитування таблиць: Рядок таблиці 2 вказує 4,65 мг/мл екстракту, вихід 23,2% і RSA 95,35 ± 0,10%. Анотація пов'язує назву виду з 96,16% і 4,51 мг/мл, тоді як таблиця й опис результатів пов'язують ці другі числа з Armillaria mellea. Записано зчитаний рядок разом із розбіжністю. Таблиця 3: зола 10,75%, жир 5,91%, вологість 9,34%, білок 31,20%, вуглеводи 42,81%; окремо не вказано нормалізацію щодо сухої чи свіжої маси.
Значення: Це хімічна активність in vitro, а не доведене лікування, харчова доза чи технологічне впровадження. Результат активності та концентрація стосуються того самого експерименту, хоча типи записів моделі є окремими. Відсутні кількісні параметри та невказану основу складу збережено для розширення моделі.
Пошук інших застосувань і ланцюжок посилань
Обсяг пошуку: Перевірено лікувальні, траволікувальні, технічні, фарбувальні, пряно-смакові, культурні та біотехнологічні застосування під назвами ceciliae та inaurata. Опрацьовані первинні джерела підтверджують дослідження екстракту й таксономії; вони не демонструють впровадження, лікування людини чи виробництва ліків. Традиційне використання не виключено самою лише відсутністю досліджень.
Нез'ясовані сліди: Пошук вказав на пакистанське зведення Sultana і Qureshi 2007, що описує назву ceciliae як medicinal. Повне джерело не отримано: сервер повернув помилку 500. Ціль застосування, дозу чи тотожність європейського виду не виводили з фрагмента таблиці. Повідомлення, позначені як aff.ceciliae з Гватемали, і старіші мексиканські назви також не були автоматично ототожнені з європейським видом. Точні запити та статуси збережено в документації.
Доповнення після розширення спільної моделі
Стеригми та субгіменій: У зведеному європейському описі Tulloss ширина стеригми сягає 3,1 мікрометра. Нижньої межі не наведено. Субгіменіальну зону виміряно окремо в точках wst-near (15–35 мікрометрів) і wst-far (50–70 мікрометрів). Це два різні вимірювання джерела; з них не утворювали діапазону 15–70 мікрометрів. Кількість шарів залишається окремою інформацією, що вимагає розширення моделі.
Шкірка шапинки — окремі колекції: Шкірка збору E. W. Brown має товщину 155–220 мікрометрів, а шкірка зрілого зразка Perreau 475 має 65–95 мікрометрів. Цей другий зразок залишили на виставці перед висушуванням. Колекції не змішували і не приписували товщину всієї шкірки її окремим шарам. В обох автор описує гель біля самої поверхні, а у Brown — явно нежелатинізований subpellis і субрадіальне розташування звичайних гіфів. Гіаліновість у зборі Zugna стосується виключно покриття ixocutis, а не пігментованого шару cutis.
Клітини покривала: В описі покривала на шапинці Tulloss згадує, серед іншого, кулясті й еліпсоїдні клітини, а також їхнє кінцеве розташування та короткі ланцюжки. Запис цих частин інформації не замінює відсутніх визначень «майже», грушоподібної форми, частки клітин відносно гіфів або окремого лічильника до трьох клітин у ланцюжку. Покривало біля основи ніжки збору Zugna зберігає свій окремий діапазон.
Верифікація поширення — обсяг та обмеження
Матеріал: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Обсяг зчитування: Задокументоване спостереження.
Дата перегляду: 19.10.2026.
Обмеження: Це огляд опублікованих визначень; повторного визначення матеріалу або генотипування не проводилося.
Верифікація поширення — обсяг та обмеження
Матеріал: Udokumentowany zbiór z województwa podkarpackiego.
Обсяг опрацювання: Фрагменти джерел.
Опрацьовано фрагмент джерела; повний текст і методи не були верифіковані.
Дата перегляду: 21.10.2026.
Обмеження: Вихідне визначення та обсяг поняття збережено. Не декларувалося нового дослідження зразків чи опрацювання всіх публікацій, цитованих джерелом.
Обсяг опрацювання
Перед завершенням запис потребує доповнення або врегулювання.
- Пошук регіонів поширення вимагає розрахунку.
Правова основа та межі оцінки
Аналітичні результати
Склад і лабораторна активність
- Активність дослідженого екстракту
- Активність дослідженого екстракту: антиоксидантна активність (екстракт, активність виявлено, метанольний екстракт плодових тіл AKATA3037). [32]
- Концентрація експозиції досліджуваного матеріалу
- Концентрація експозиції досліджуваного матеріалу: 4,65 mg/ml (DPPH, екстракт, метанольний екстракт плодових тіл AKATA3037, наведене значення). [32]
Найважливіші речовини та їхня дія
Найважливіші речовини та їхня дія
У лабораторних дослідженнях, проведених на метанольних екстрактах із висушених плодових тіл, аналізували хімічний склад і антиоксидантні властивості тканин.
Найважливіші речовини та їхня дія
Екстракти з плодових тіл показали здатність до нейтралізації вільних радикалів у тесті DPPH.
Найважливіші речовини та їхня дія
Екстракти з плодових тіл продемонстрували в лабораторних умовах антиоксидантну активність на рівні 95,35 ± 0,10% при концентрації екстракту 4,65 мг/мл.
Найважливіші речовини та їхня дія
Біохімічний аналіз сухої маси виявив вміст 31,20% білка, 42,81% вуглеводів, 5,91% жиру та 10,75% золи при залишковій вологості 9,34%.
Найважливіші речовини та їхня дія
Антиоксидантна активність екстрактів, досліджена в лабораторних умовах, не є підтвердженням лікувальних властивостей після вживання гриба.
Найважливіші речовини та їхня дія
Дослідження генетичних послідовностей у межах секції Vaginatae підтверджують відокремленість європейських еволюційних ліній мухомора золотистого.
Оселище та поширення
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Плодоношення | Джерела |
|---|---|---|---|
| Польща | Підкарпатське воєводство | VI–X |
|
Джерела
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (także [22])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (także [19])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (także [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (także [23])
- Marek Snowarski/GRej, Amanita ceciliae (także [24])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- Muchomor złotawy — czytelny opis materiału i źródłowe wyniki
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015