
Ядомы

Патрабуе апрацоўкі

У сырым выглядзе атрутны

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.
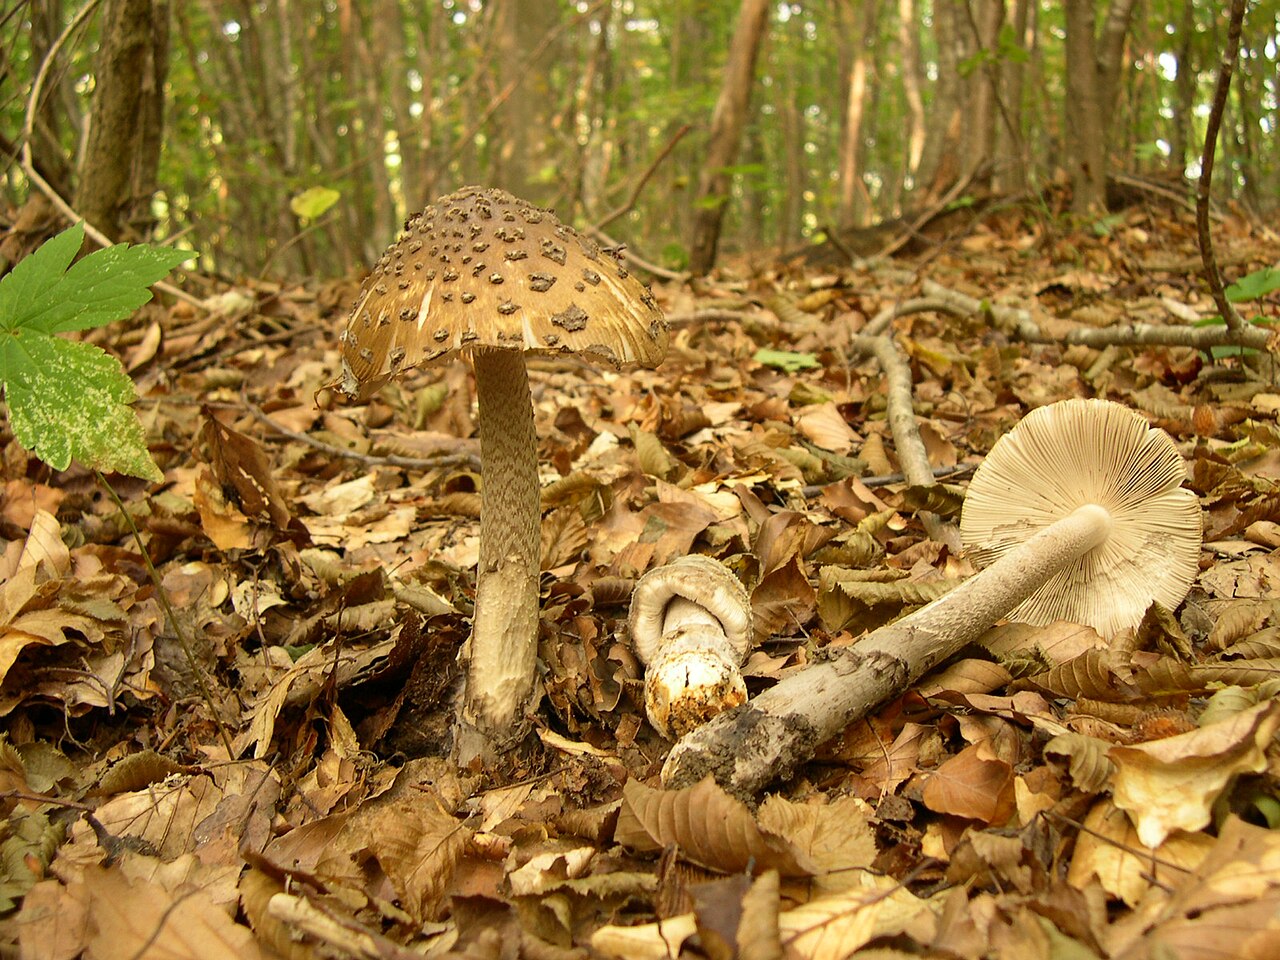
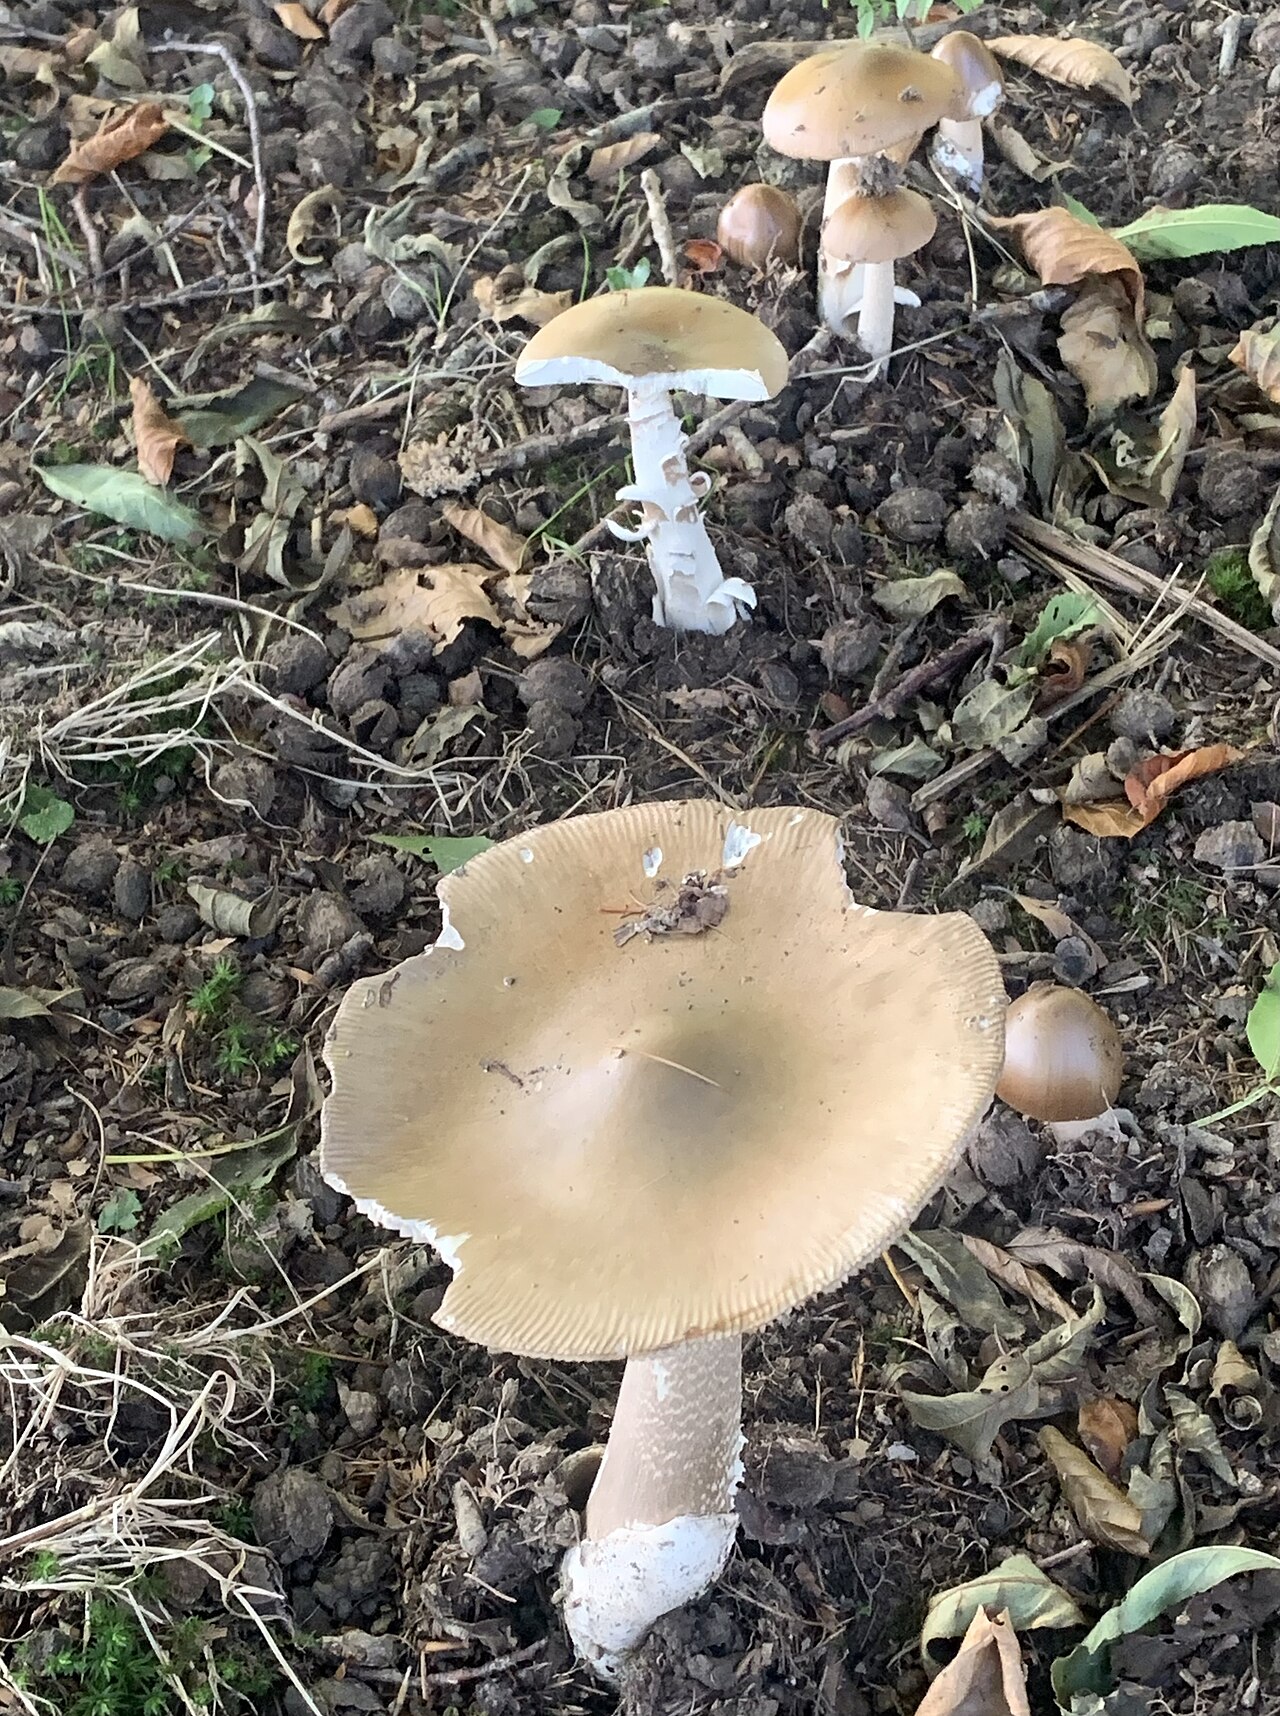
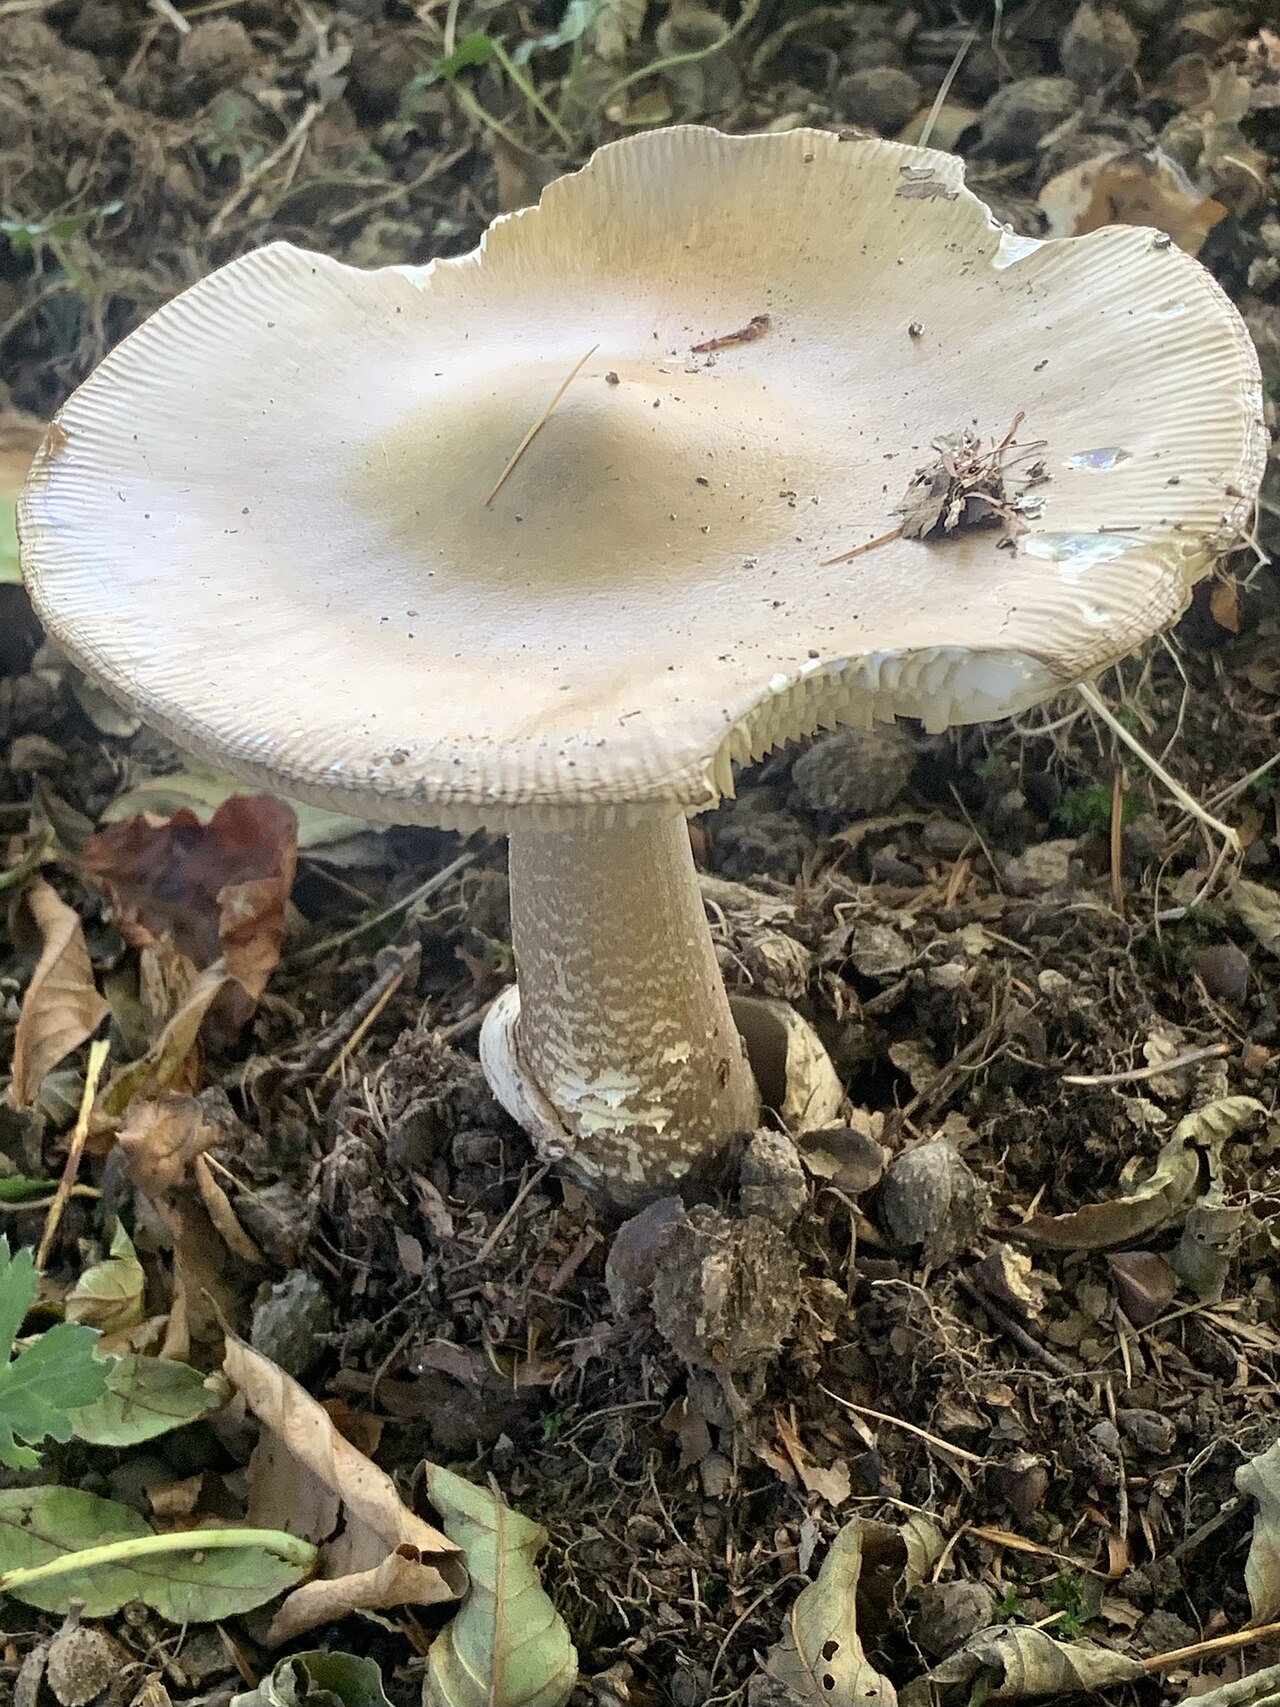
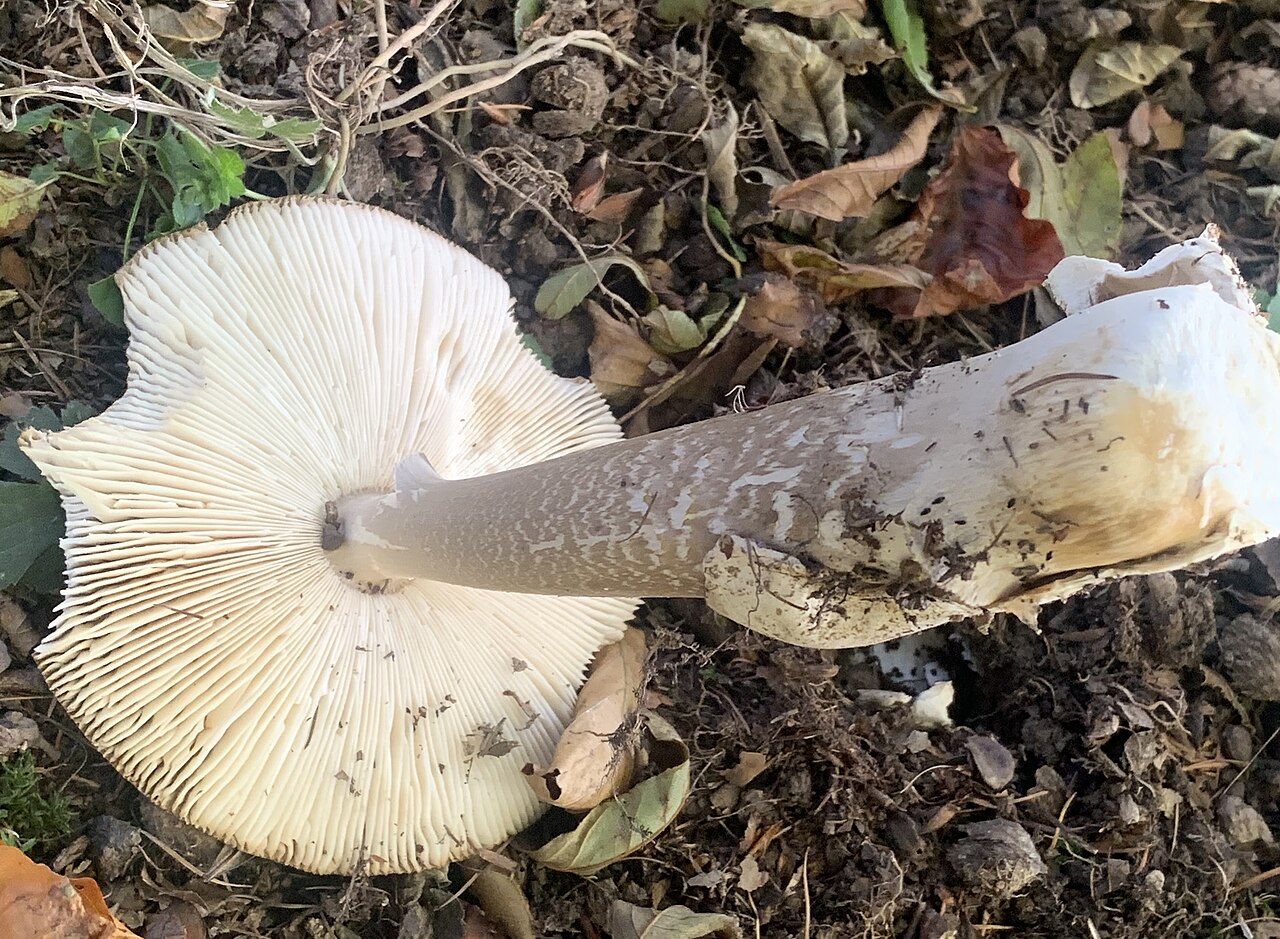
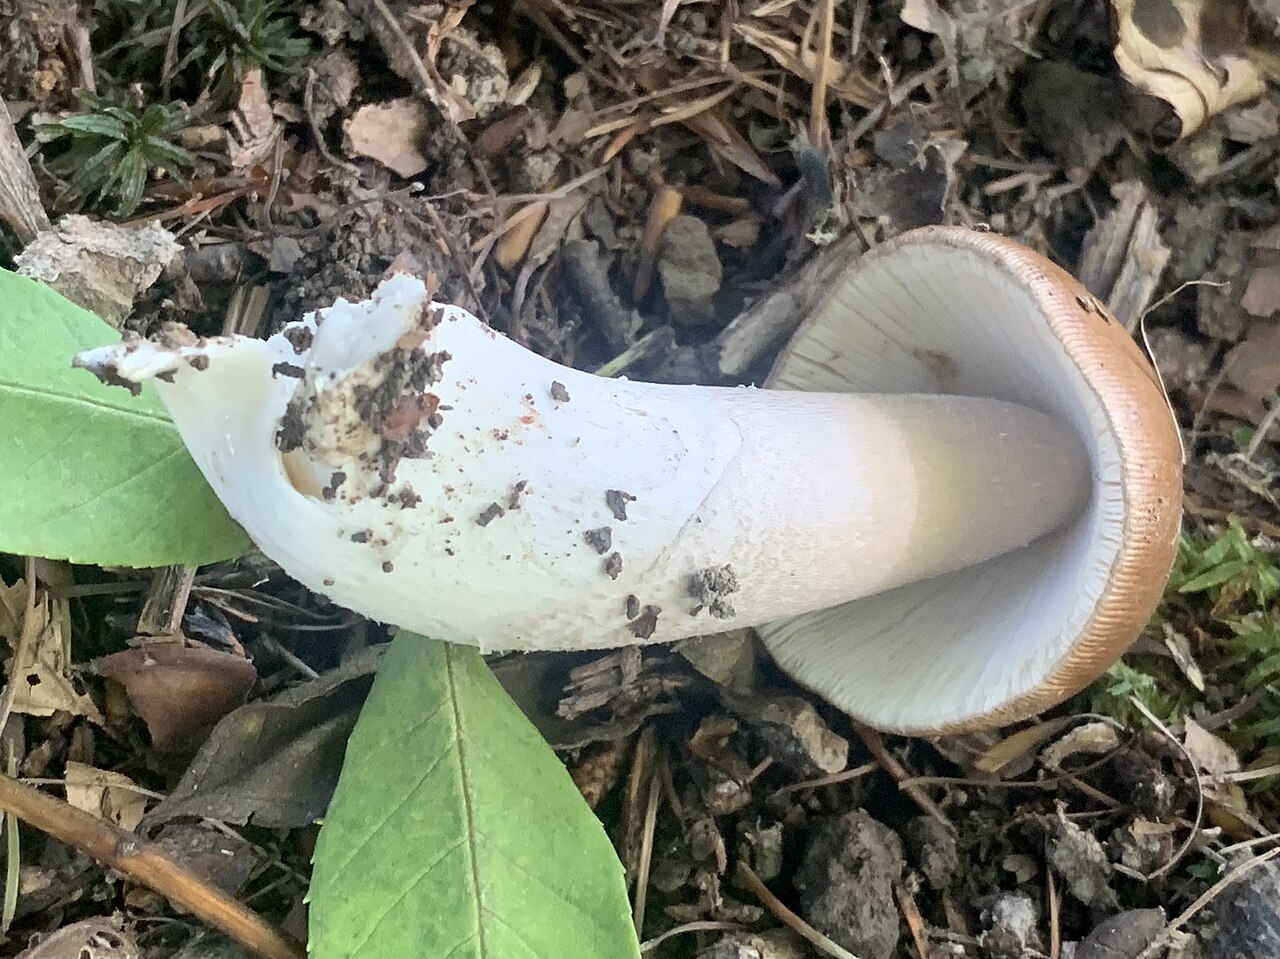
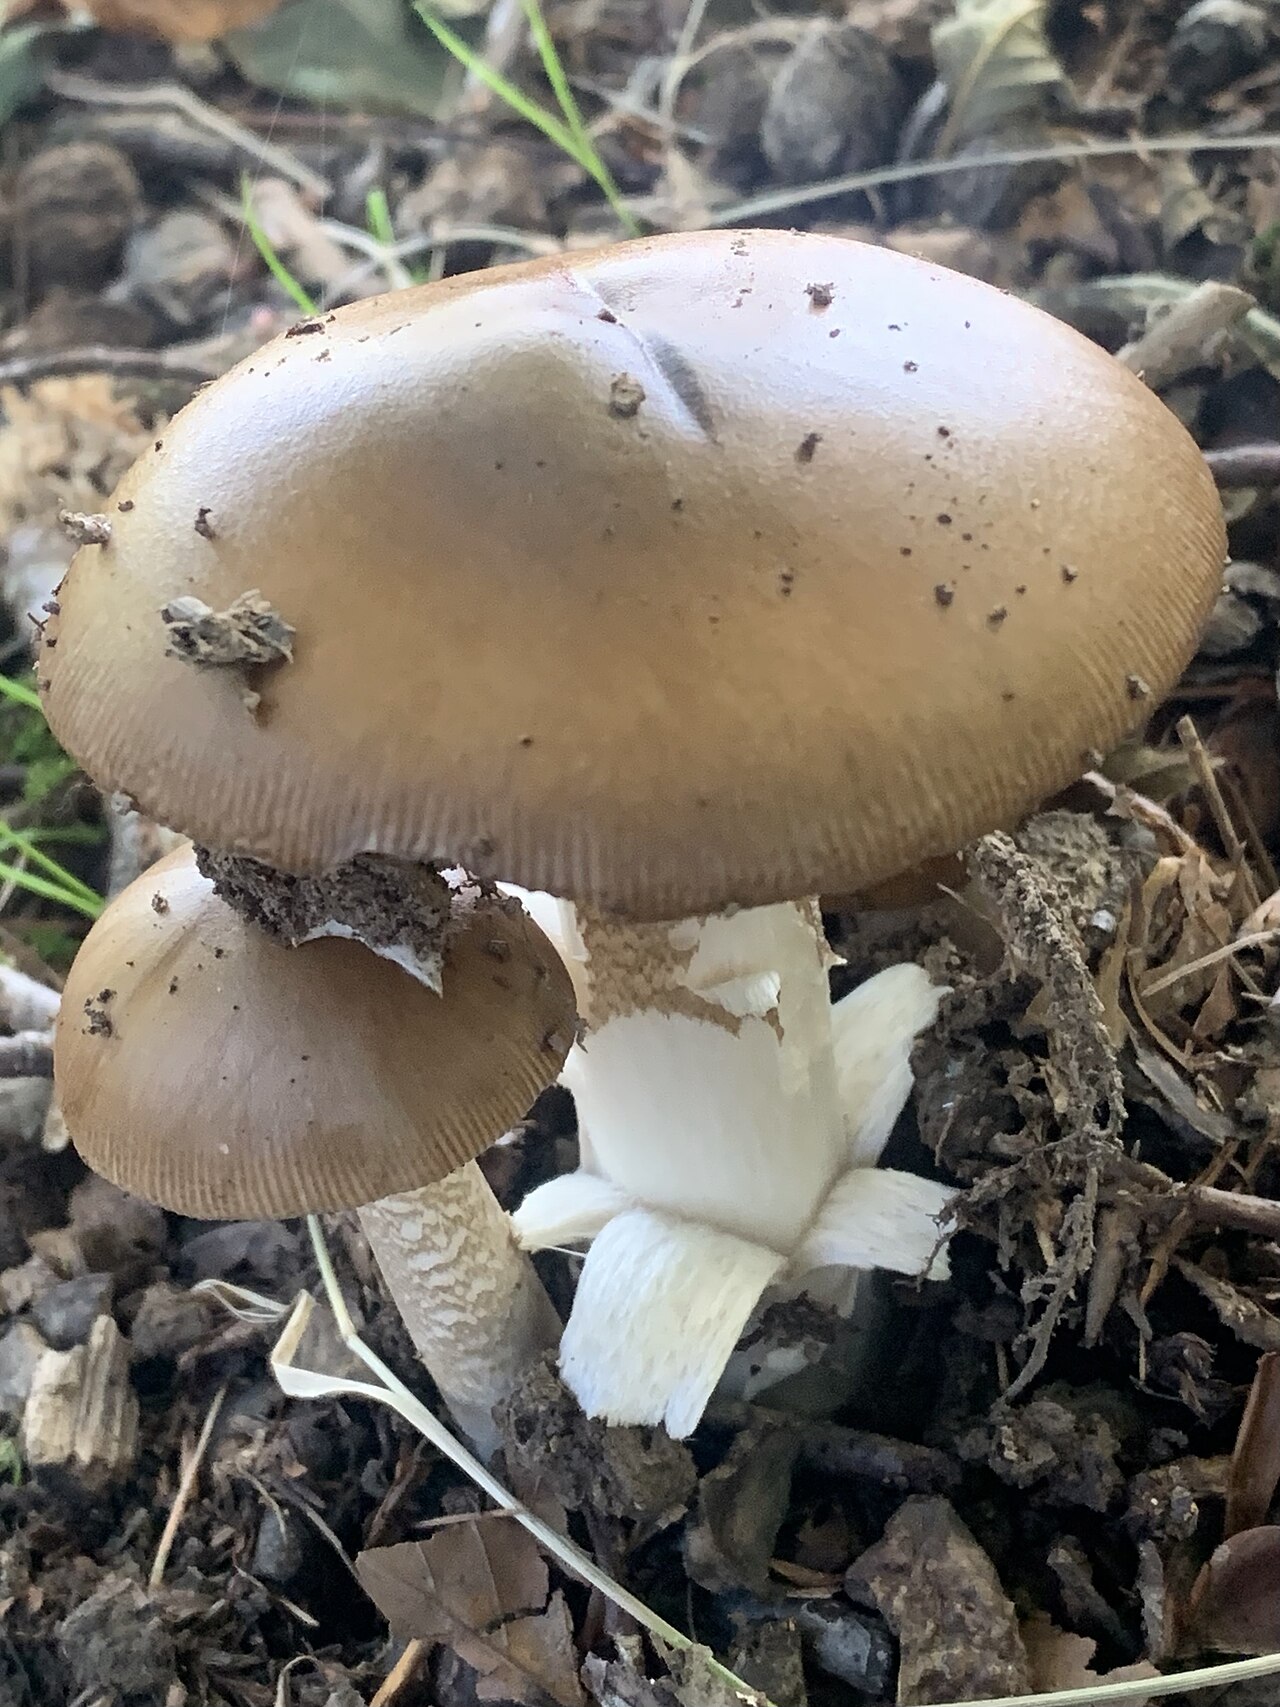
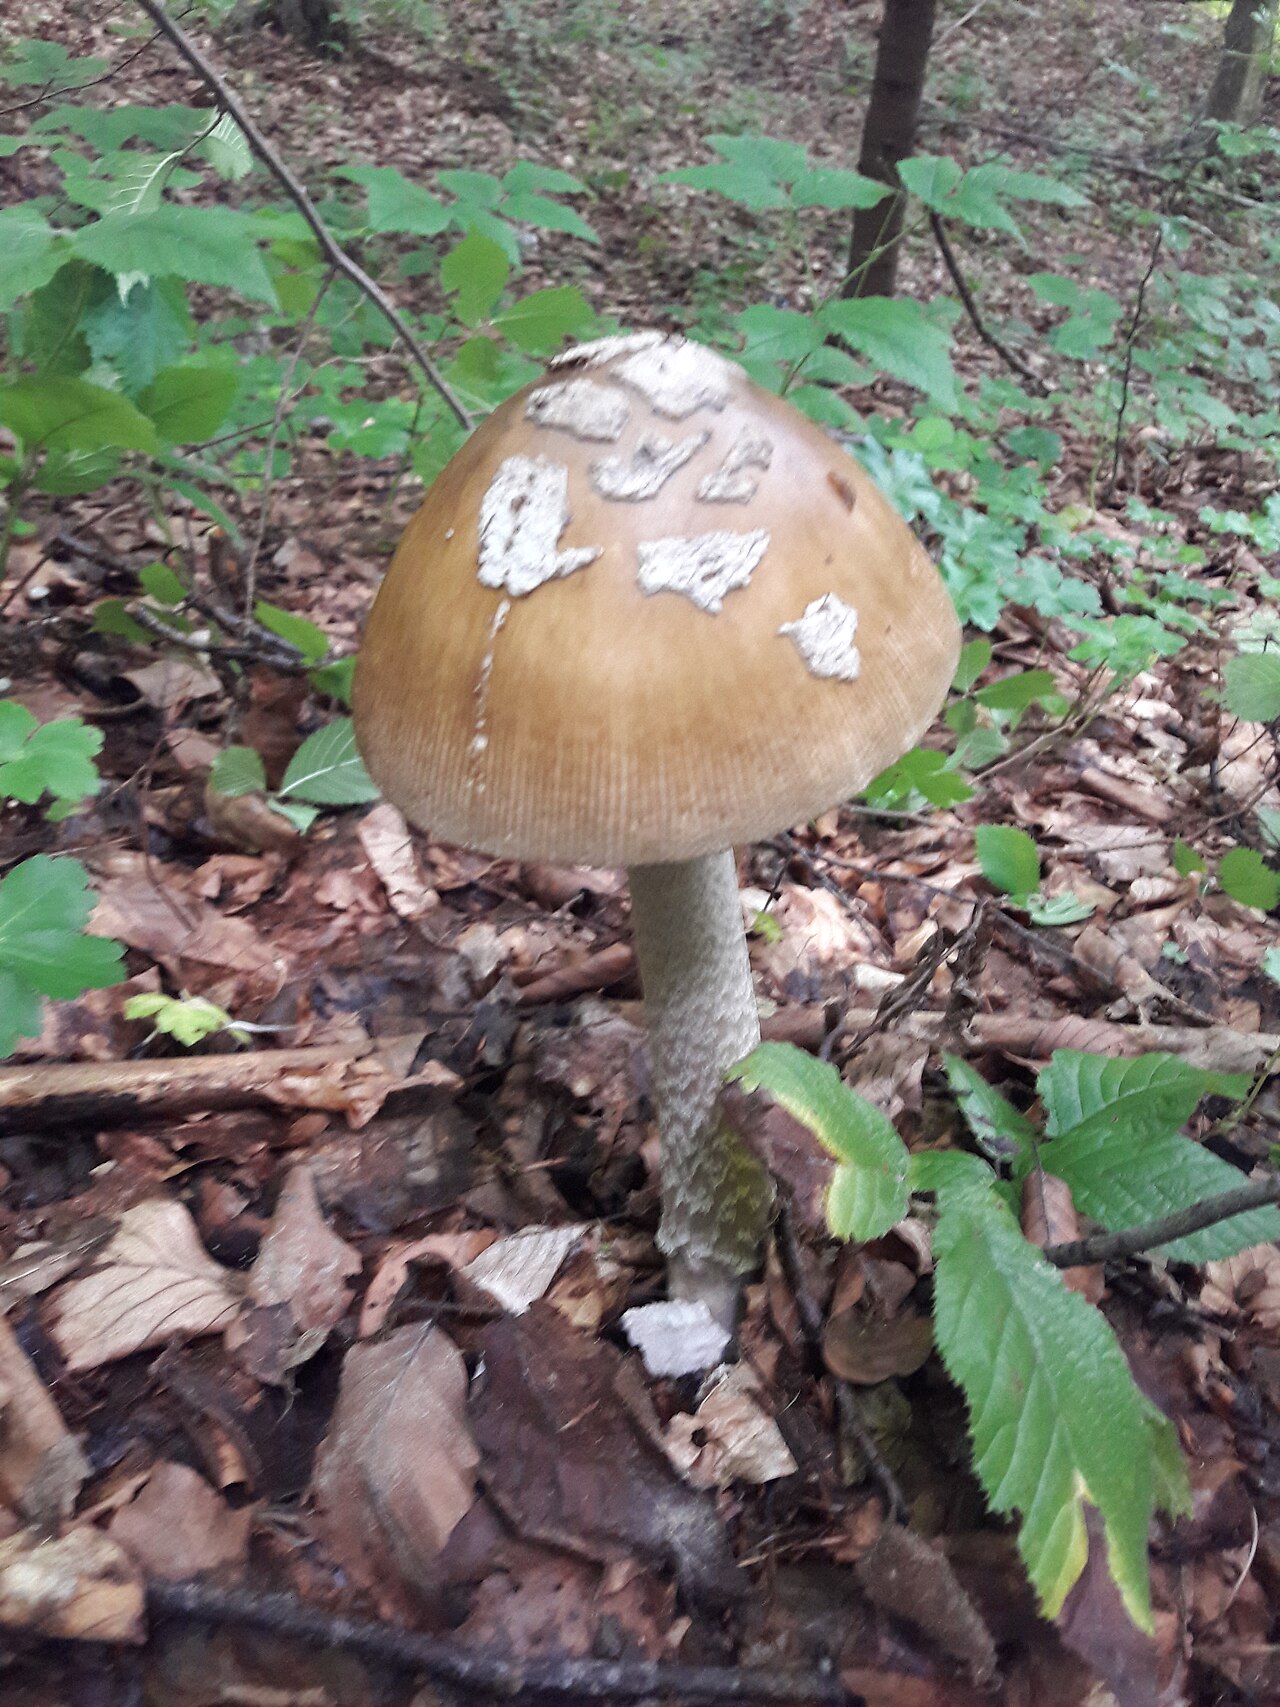
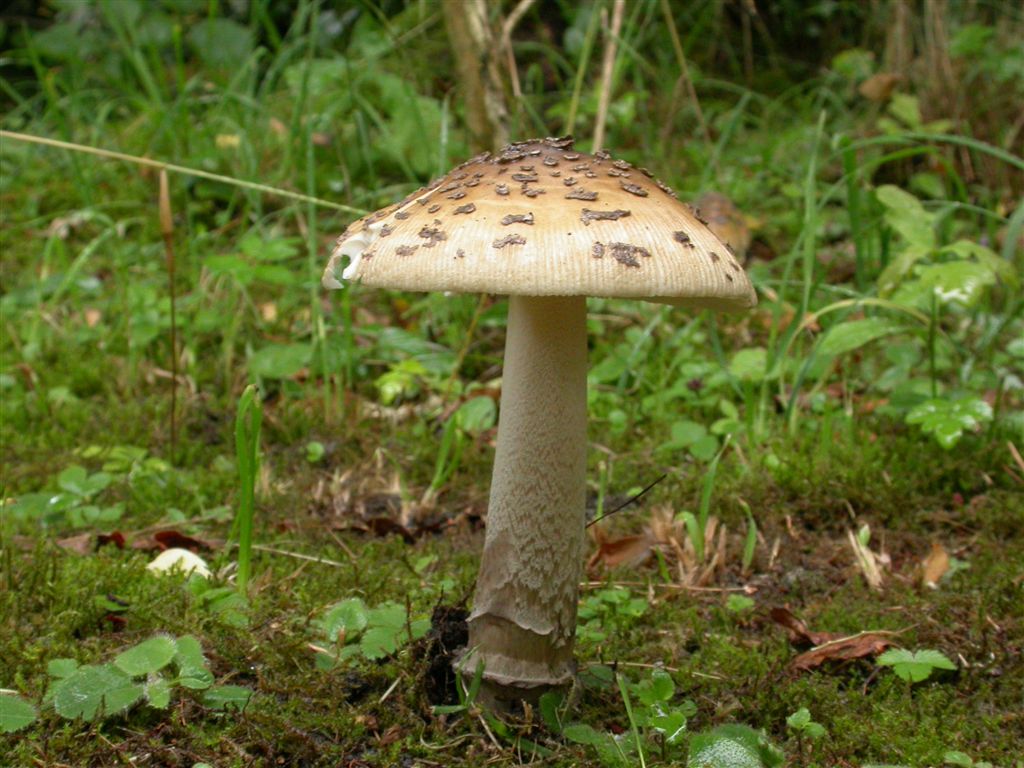
Amanita ceciliae — буйны шапкавы грыб з роду Amanita падсямейства паплаўкоў. Адрозніваецца вялікім жаўтлява-карычневым альбо шэра-бурым капялюшыкам з буйнымі цёмна-шэрымі шматкамі агульнага покрыва, выразна рубчастым краем, ломкай белаватай ножкай без кольца і шэрай няўстойлівай вольвай.
Распазнаванне, асяроддзе пражывання і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- Форма капялюшыка: яйкападобны.
Форма капялюшыка: плоскі.
у маладых пладовых цел: Форма капялюшыка: яйкападобны.
у спелых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: звонападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у спелых пладовых цел: Форма капялюшыка: плоскі.
Форма капялюшыка: выпуклы. - Бляск паверхні капялюшыка
- у сухім стане: Бляск паверхні капялюшыка: матавы.
- Ліпкасць і слізістасць капялюшыка
- у мокрым стане: Ліпкасць і слізістасць капялюшыка: ліпкі.
- Колер капялюшыка
- Колер капялюшыка: шэра-карычневы.
Колер капялюшыка: аліўкава-карычневы.
Колер капялюшыка: чырвона-карычневы.
Колер капялюшыка: жоўта-карычневай.
Колер капялюшыка: шэраваты.
Колер капялюшыка: жоўты.
Колер капялюшыка: палевы.
Колер капялюшыка: аліўкавай.
Колер капялюшыка: каштанавы. - Размяшчэнне краю
- у старых пладовых цел: Размяшчэнне краю: адагнуты ўгару.
Размяшчэнне краю: падгорнуты ўнутр. - Рэльеф паверхні краю капялюшыка
- Рэльеф паверхні краю капялюшыка: баразнаваты.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 50–200 mm.
- Працягласць рубчастасці краю шапкі
- Працягласць рубчастасці краю шапкі: 0,25 (адносна радыуса шапачкі).
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: пласцінкі.
Пласцінкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
- Шырыня прырастання гіменафара
- Шырыня прырастання гіменафара: вузка прырослы (пласцінкі).
- Агульны профіль пласцінкі
- Агульны профіль пласцінкі: раўнамерна вузкая (пласцінкі).
- Колер гіменафора
- Колер гіменафора: шэры.
Колер гіменафора: белаватая.
Колер гіменафора: крэмава-белы. - Разгалінаванне пласцінак
- Разгалінаванне пласцінак: раздвоеныя.
- Макраскапічная будова вольнага краю пласцінак
- Макраскапічная будова вольнага краю пласцінак: гародкавы і шматкаватая.
- Натуральная афарбоўка краю пласцінкі
- Натуральная афарбоўка краю пласцінкі: чарнаваты.
- Адлегласць паміж пласцінкамі
- Адлегласць паміж пласцінкамі: блізка размешчаныя.
Адлегласць паміж пласцінкамі: блізка размешчаныя.
Адлегласць паміж пласцінкамі: густа размешчаныя. - Таўшчыня пласцінак
- Таўшчыня пласцінак: тоўсты.
- Наяўнасць кароткіх пласцінак
- Наяўнасць кароткіх пласцінак: наяўны.
Ножка і аснова
- Форма ножкі
- Форма ножкі: цыліндрычны.
- Колер ножкі
- у верхняй частцы ножкі: Колер ножкі: белы.
у сярэдняй частцы ножкі: Колер ножкі: карычняваты.
у ніжняй частцы ножкі: Колер ножкі: карычняваты.
Колер ножкі: белы.
Колер ножкі: шэра-карычневы. - Покрыва паверхні ножкі
- Покрыва паверхні ножкі: шматкаватая.
Покрыва паверхні ножкі: лускаватая.
у верхняй частцы ножкі: Покрыва паверхні ножкі: мучністы.
у верхняй частцы ножкі: Покрыва паверхні ножкі: шаўкавістая.
у ніжняй частцы ножкі: Покрыва паверхні ножкі: лускаватая. - Узор паверхні ножкі
- Узор паверхні ножкі: зігзагападобны.
- Колер арнаментацыі ножкі
- Колер арнаментацыі ножкі: белаватая.
- Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
Унутраная будова ножкі: пусты ўнутры. - Кансістэнцыя ножкі
- Кансістэнцыя ножкі: крохкі.
- Даўжыня ножкі
- Даўжыня ножкі: 80–250 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 10–40 mm.
- Вольва
- Вольва: наяўны.
Кольца
- Наяўнасць кольца
- Наяўнасць кольца: без кольца.
Бульба
- Наяўнасць клубня пры аснове ножкі
- Наяўнасць клубня пры аснове ножкі: адсутны.
Пакрывала каля асновы
- Будова покрыва каля асновы ножкі
- Будова покрыва каля асновы ножкі: палосы.
Будова покрыва каля асновы ножкі: палосы.
Будова покрыва каля асновы ножкі: мяшкападобная.
- Устойлівасць вольвы і пакрывала каля асновы да пашкоджання
- Устойлівасць вольвы і пакрывала каля асновы да пашкоджання: лёгка пашкоджваецца (элемент покрыва каля асновы ножкі: палосы).
- Устойлівасць мякаці ножкі да пералому або разрыву
- Устойлівасць мякаці ножкі да пералому або разрыву: крохкі.
- Колер похвы і пакрывала ў аснове ножкі
- Колер похвы і пакрывала ў аснове ножкі: белы (элемент покрыва каля асновы ножкі: вольва).
Мякаць
- Колер мякаці
- Колер мякаці: белы.
- Смак мякаці
- Смак мякаці: салодкі.
- Устойлівасць мякаці да пералому або разрыву
- Устойлівасць мякаці да пералому або разрыву: крохкі.
- Пах мякаці
- Пах мякаці: невыразны (мякаць).
Пах мякаці: слабы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лісцевы лес.
Месцапражыванне: хвойны лес.
Месцапражыванне: змешаны лес.
Месцапражыванне: парк.
Месцапражыванне: хвойны лес, лісцевы лес або змешаны лес. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: рассеяныя групы.
Характар росту пладовых цел: невялікімі групамі. - Частата знаходак
- Частата знаходак: нячасты.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да кастрычніка.
- Арэал распаўсюджання
- Арэал распаўсюджання: пацверджана.
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
- Спажыванне ў сырым выглядзе
- У сырым выглядзе атрутны
Права
- Ахова
- У Польшчы від не падлягае відавой ахове.
- Гандаль
- У Польшчы від не дапушчаны да гандлю або вытворчасці грыбной прадукцыі.
З чым можна паблытаць
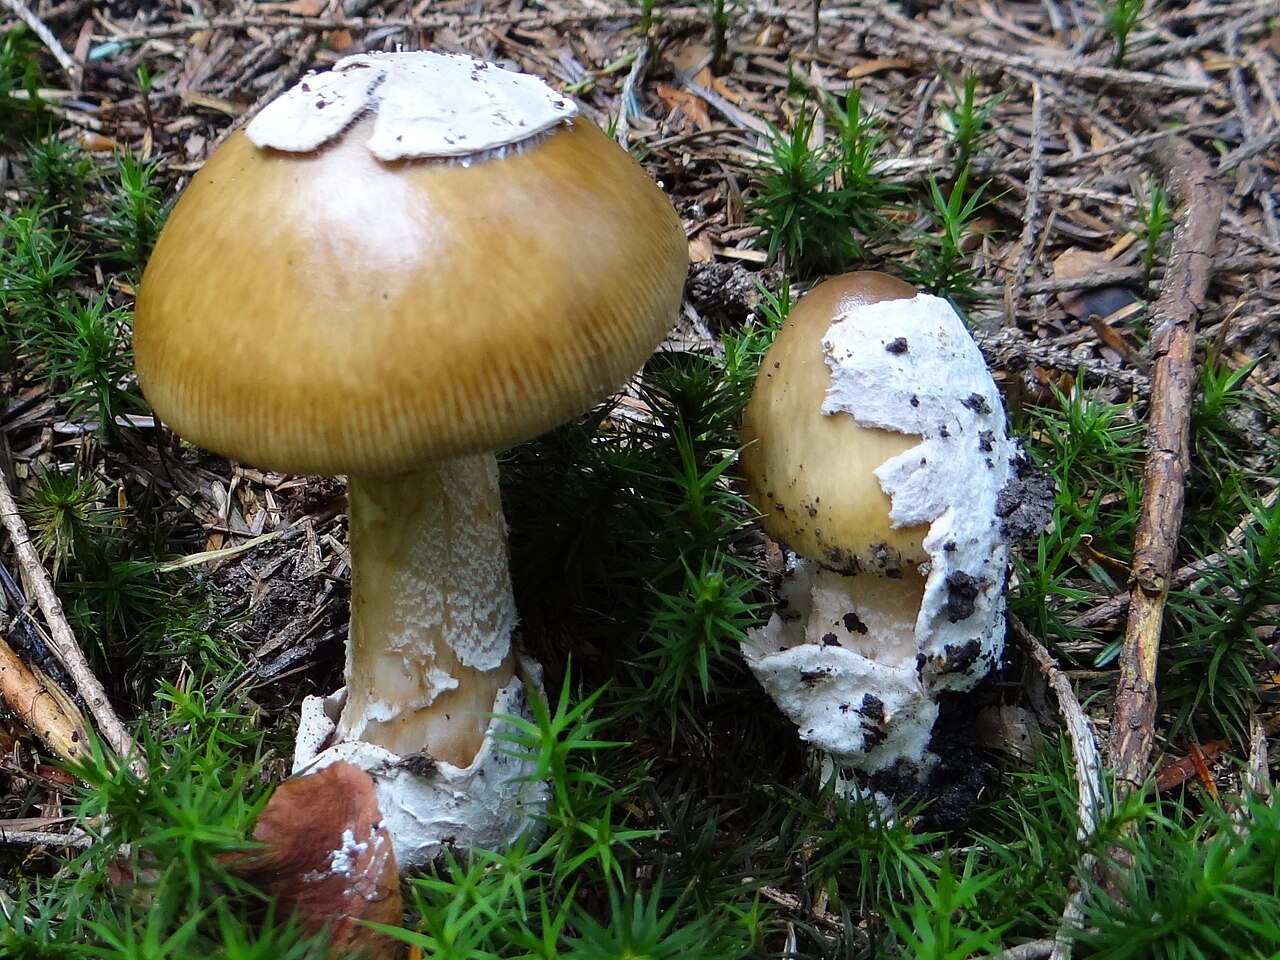
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Крыніца фотаздымка · CC BY-SA 3.0Amanita submembranacea
Найважнейшыя адрозненні
Мухамор карычнева-аліўкавы (Amanita submembranacea) адрозніваецца наяўнасцю буйных фрагментаў пакрывала на шапцы і вольвай, якая шэрае знутры, растучы пераважна ў горных лясах на кіслых глебах.
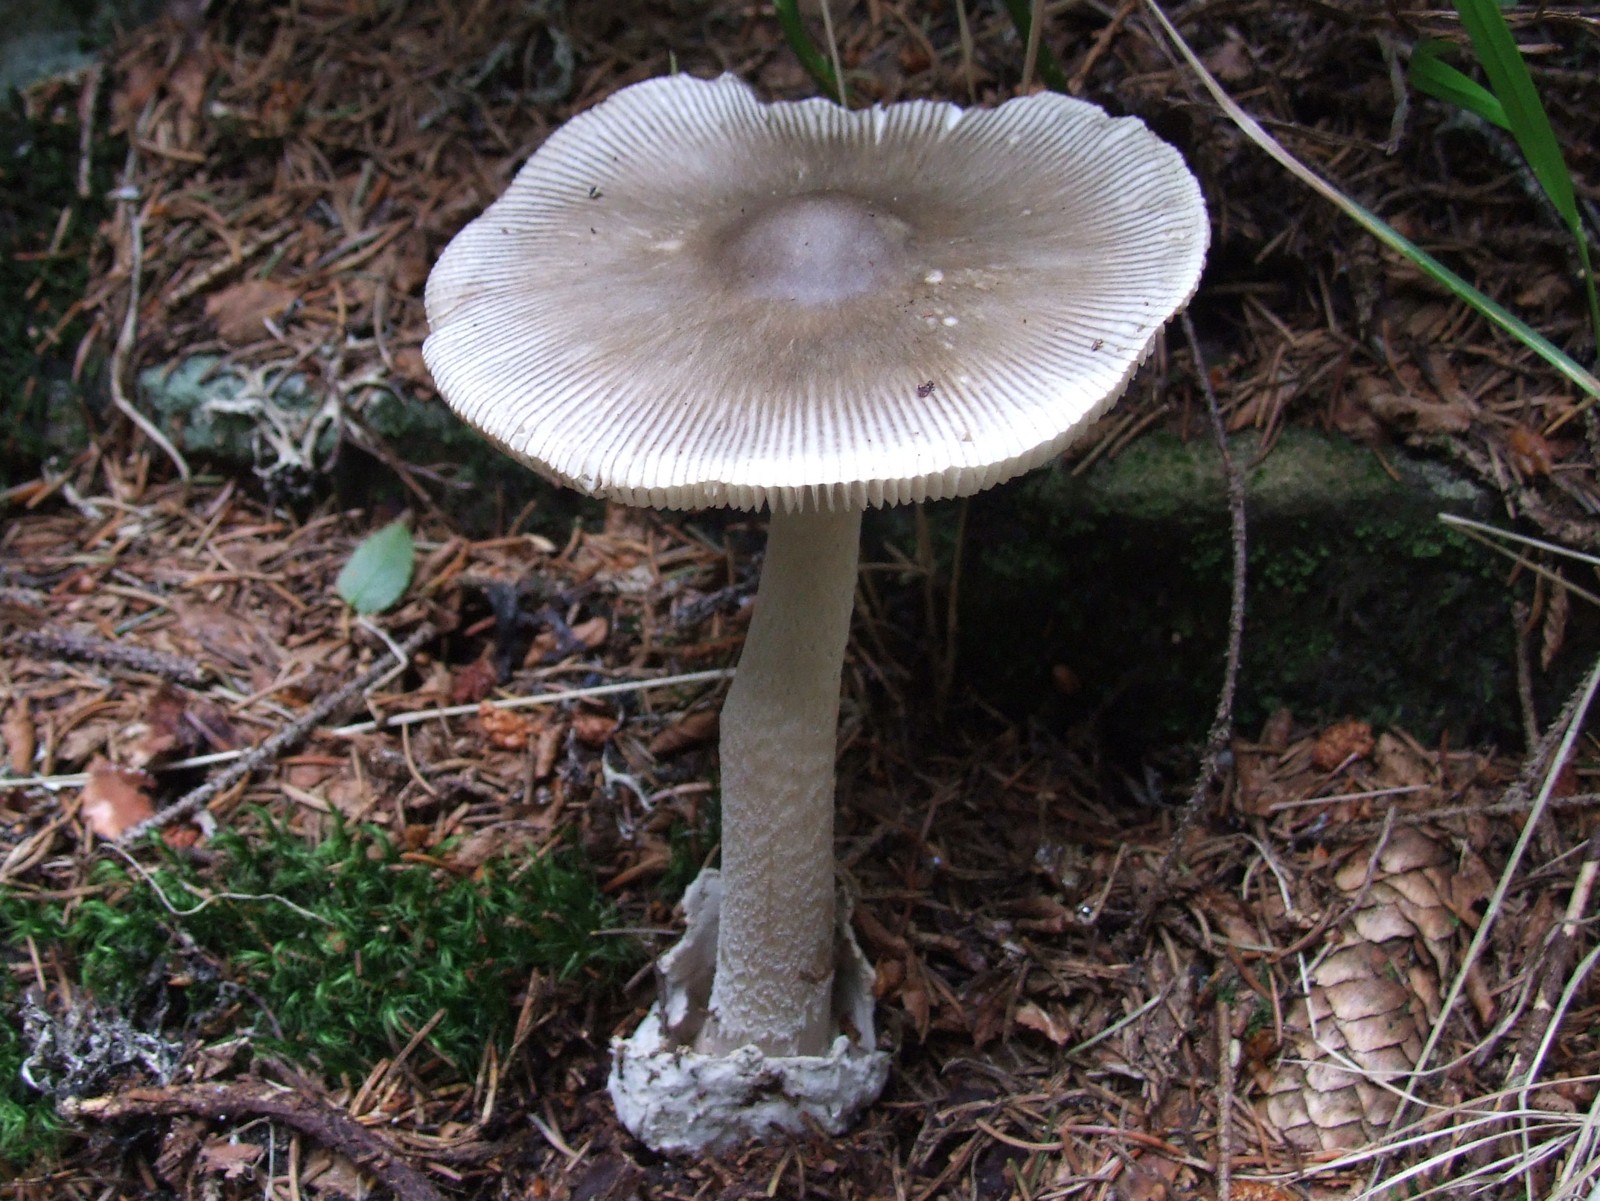
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Крыніца фотаздымка · CC BY-SA 4.0Amanita vaginata
Найважнейшыя адрозненні
Мухамор шэры (Amanita vaginata) вылучаецца гладкай белай ножкай без цёмных лускавінак і зігзагападобнага ўзору.
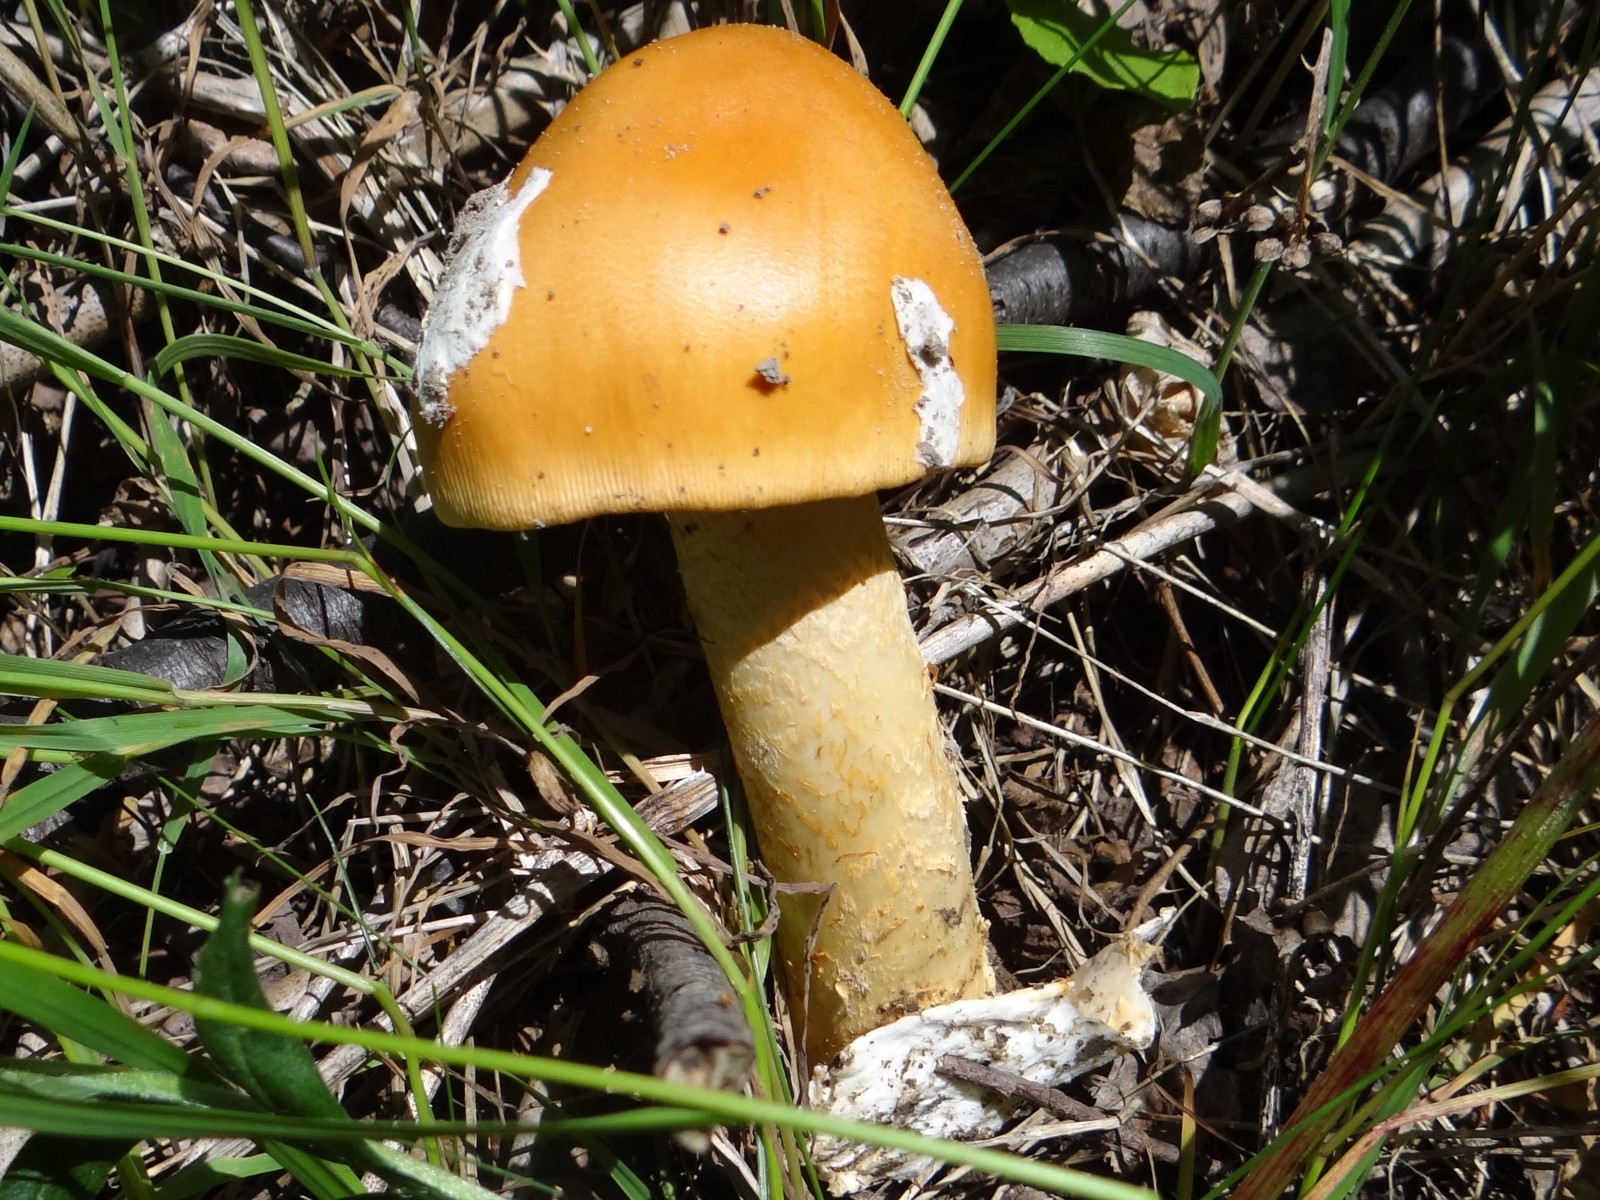
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Крыніца фотаздымка · CC BY-SA 4.0Amanita crocea
Найважнейшыя адрозненні
Мухамор жаўтаваты (Amanita crocea) мае шапку ярка-шафранавую да аранжава-жоўтай і вольву, афарбаваную знутры ў аранжавы колер.
Amanita pantherina
Найважнейшыя адрозненні
Від можна сблытаць з моцна ядавітым мухаморам плямістым (Amanita pantherina). Мухамор плямісты мае выразны пярсцёнак на ножцы і клубень з валікамі ў аснове, аднак у дождж або ў старэйшых экзэмпляраў пярсцёнак можа сцерціся і апасці.
Amanita friabilis
Найважнейшыя адрозненні
Amanita friabilis значна меншы (шапка да 6 см), мае драбнейшыя споры і сустракаецца выключна пад алешынамі.
Amanita fulva
Найважнейшыя адрозненні
Мухамор іржава-карычневы (Amanita fulva) мае шапку ў лісіна-рудых і палева-аранжавых адценнях, а таксама гладкую ножку і іржавеючую похву.
FAQ
У гонар каго названы грыб?
У гонар Сесіліі Берклі, жонкі знакамітага брытанскага міколага Майлза Берклі.
Ці ядомы гэты від?
Так, але з'яўляецца ўмоўна-ядомым і вымагае абавязковага адварвання перад ежай.
Ці можна ўжываць грыб сырым?
Не, сыры грыб змяшчае таксіны, якія выклікаюць моцнае страўнікавае атручэнне.
З якімі дрэвамі від стварае мікарызу?
Пераважна з шыракалістымі пародамі: дубам, букам, грабам і ліпай.
Які памер мае капялюшык?
Капялюшык буйны, часта дасягае ад 8 да 18 сантыметраў у дыяметры.
Ці ёсць у грыба кольца на ножцы?
Не, у гэтага віду ніколі не бывае кольца на ножцы.
Якая галоўная адметнасць капялюшыка?
Наяўнасць буйных шэрых шматкоў пакрывала і выразна рубчасты край.
У які перыяд года можна сустрэць грыб?
Грыб з'яўляецца з канца чэрвеня па кастрычнік, асабліва пасля дажджоў.
Як называлі гэты від у Англіі?
У Англіі яго традыцыйна называлі змеяпадобным паплаўком з-за малюнка на ножцы.
Які смак мае прыгатаваны грыб?
Мякаць прыемная, саладкавая, без горкага ці непрыемнага прысмаку.
Аматар
Назвы і гісторыя
- Obowiązująca nazwa krajowa
- Muchomor złotawy
- Obowiązująca nazwa taksonomiczna
- Amanita ceciliae (Berk. & Broome) Bas
- Pozostałe nazwy
- muchomor pochwiasty forma łuskowata, muchomor wężowoskóry, gryzetka złotawa, mglejarka wężowoskóra, mglejarka złotawa, podsadka złotawa
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: белы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: шарападобны. Форма споры: шарападобны. Форма споры: амаль шарападобны. Форма споры: шарападобны. Форма споры: шарападобны (амаль). Форма споры: шарападобны. Форма споры: шарападобны (амаль).
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 9,5–25 µm, шырыня 8,6–25 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджанне
- Вапнавасць глебы
- Вапнавасць глебы: вапнавы.
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: бук.
Лісцевыя дрэвы ў наваколлі: граб.
Лісцевыя дрэвы ў наваколлі: дуб. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: піхта.
- Тып жыўлення
- Тып жыўлення: Мікарызны.
Некулінарнае прымяненне
У традыцыйным быце брытанскіх і альпійскіх вёсак настой са спелых і пераспелых пладовых цел гэтага грыба часам служыў сродкам для таніравання натуральнага льну і вырабу пігменту шэра-карычневых адценняў. У сучаснасці Amanita ceciliae знаходзіць прымяненне пераважна ў сферы экалагічнай асветы і мікалагічнай адукацыі. Буйныя пладовыя целы ідэальна падыходзяць для вывучэння распаду агульнага покрыва і будовы пласцінак на практычных семінарах і выставах жывых грыбоў. Акрамя гэтага, унікальны 'змеіны' мармуровы малюнак на ножцы робіць гэты від вельмі запатрабаваным аб'ектам прафесійнай прыродазнаўчай фатаграфіі і батанічнага жывапісу.
Гісторыя і культура
Гэты від быў упершыню апісаны выбітным брытанскім міколагам Майлзам Джозефам Берклі ў 1854 годзе і названы ім у гонар сваёй жонкі Сесіліі Берклі, якая дапамагала яму ў зборы і батанічных ілюстрацыях. У старадаўняй ангельскай мікалагічнай традыцыі грыб часта называлі 'змеяпадобным паплаўком' з-за характэрнага шэрага лускаватага ўзору на ножцы і паверхні шапкі. У сярэднявечнай культуры і фальклоры германскіх народаў буйныя лясныя грыбы без кольцаў часта надзяляліся сувяззю з падземнымі сіламі прыроды. Гістарычныя гербарыі Лонданскага Лінееўскага таварыства і сёння захоўваюць арыгінальныя малюнкі і апісанні гэтага віду, выкананыя з вялікай пашанай да навуковай спадчыны.
Ядомасць і бяспека
Грыб лічыцца ўмоўна-ядомым, аднак патрабуе абавязковай дбайнай папярэдняй тэрмічнай апрацоўкі перад любым спажываннем. У неапрацаванай сырой мякаці прысутнічаюць тэрмалабільныя рэчывы, якія пры трапленні ў арганізм выклікаюць раздражненне слізістай абалонкі страўнікава-кішачнага тракту. Бяспечнае спажыванне магчыма толькі пасля адварвання на працягу дваццаці хвілін з наступным зліваннем булёну. Правільна апрацаваная мякаць вылучаецца мяккім, салодкім смакам без гаркаты і далікатнай тэкстурай. У такіх краінах, як Францыя ці Італія, дасведчаныя грыбнікі збіраюць яго дзеля прыемнага водару, аднак у большасці іншых еўрапейскіх рэгіёнаў яго не збіраюць праз небяспеку памылак.
Асяроддзе пражывання і распаўсюджанне
Amanita ceciliae распаўсюджаны ў шыракалістых і мяшаных лясах умеранага кліматычнага пояса Еўразіі і Паўночнай Амерыкі. Грыб утварае эктамікарызу з дубам, букам, грабам, ліпай, радзей сустракаецца пад бярозамі або ляснымі арэхамі. Аддае перавагу багатым на перагной, умерана вільготным сугліністым, карбанатных або вапнавых глебах, часта сустракаецца ў цяністых дубровах і старых бучынах. У Еўропе перыяд актыўнага плоданашэння пачынаецца ў канцы чэрвеня або пачатку ліпеня і працягваецца да кастрычніка. У паўночных ускраінах свайго арэала від сустракаецца адзінкава і вельмі рэдка, тады як у Цэнтральнай і Паўднёвай Еўропе ў цёплыя летнія месяцы пасля праліўных дажджоў утварае лакальныя групы пладовых цел.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Karel Tejkal/Česká mykologická společnost, Amanita ceciliae — atlas i bibliografia · Kuchyňské využití, ацэнка аўтара, без даследавання клінічнай бяспекі
- Спажыванне ў сырым выглядзе
- Атрутны
Materiał: surowy
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Спіс Amanita inaurata*: таксічныя ў сырым або недавараным выглядзе; дыдактычная крыніца, не аналіз таксіну віду
- Ядомасць
- Атрутны
Materiał: po niedostatecznej obróbce
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Спіс Amanita inaurata*: таксічныя ў сырым або недавараным выглядзе; дыдактычная крыніца, не аналіз таксіну віду
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
Wynika z potwierdzonej toksyczności materiału surowego.
SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień2019 · Lista Amanita inaurata*: toksyczne surowe lub niedogotowane; źródło dydaktyczne, nie analiza toksyny gatunku
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Amanita ceciliae (Berk. & Broome) Bas
Навуковыя назвы і таксанамія
Amanita ceciliae (Berk. & Broome) Bas належыць да сямейства мухаморавых (Amanitaceae) і секцыі Vaginatae. Ён быў апісаны ў 1854 годзе Берклі і Брумам пад базанімам Agaricus ceciliae, а ў род Amanita перанёс яго Карнеліс Бас у 80-я гады XX стагоддзя.
Навуковыя назвы і таксанамія
У даўнейшых мікалагічных працах гэты від сустракаўся між іншым пад назвамі Amanita inaurata, Amanitopsis inaurata і Amanitopsis ceciliae. Назва Amanita strangulata выкарыстоўвалася многімі аўтарамі ў шырокім, неадназначным сэнсе (sensu auct. mult.).
Гістарычны абсяг назваў і трактовак віду
У англасаксонскай літаратуры функцыянуе назва Snakeskin Grisette, а ў нямецкай — Riesen-Scheidenstreifling.
Абсяг таксона і абмежаванні вызначэння
Таксанамічныя даследаванні паказалі, што частка паўночнаамерыканскіх грыбоў, якія раней апісваліся як A. ceciliae або A. inaurata, належыць да асобных відаў, такіх як Amanita rhacopus і Amanita variicolor. Сучаснае разуменне A. ceciliae адносіцца да еўрапейскіх папуляцый.
Абсяг таксона і абмежаванні вызначэння
У філагенетычных даследаваннях секцыі Vaginatae пацверджана пазіцыя еўрапейскага таксона A. ceciliae (прадстаўленага між іншым зборамі з Венгрыі) з выкарыстаннем аналізу паслядоўнасцей чатырох локусаў: ITS, LSU, RPB1 і TEF1-α.
- Zakres ujęcia taksonomicznego
Profil obejmuje doniesienia z niezależnych europejskich źródeł pod nazwą Amanita ceciliae, w tym osobno udokumentowany węgierski okaz dowodowy DB-2018-07-08-5/AD22. Nie stanowi ponownego oznaczenia wszystkich okazów opisanych w atlasach ani nie utożsamia z materiałem europejskim meksykańskich ujęć inaurata/ceciliae, ujęcia Kaqchikel aff. ceciliae, A. sororcula lub innych ujęć pozaeuropejskich.
[13] [10] [14] [3]
Экалогія і распаўсюджанне
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
- Даўжыня стэрыгмы базідыі
- Даўжыня стэрыгмы базідыі: да 8,4 µm. [34]
- Колькасць спор на базідыі
- Колькасць спор на базідыі складае 4. [36]
Колькасць спор на базідыі складае 2. [36]
Колькасць спор на базідыі складае 2. [34]
Колькасць спор на базідыі складае 4. [34] - Форма базідыі
- Форма базідыі: булавападобны. [36]
- Шырыня стэрыгмы
- Шырыня стэрыгмы: да 3,1 µm. [34]
Пражкі
- Спражкі
- Спражкі: не назіралася. [36]
Астатнія лабараторныя прыкметы
- Фертыльнасць краю пласцінак
- Фертыльнасць краю пласцінак: стэрыльная. [36]
- Вымярэнне падгіменіяльнай зоны
- Вымярэнне падгіменіяльнай зоны: 15–35 µm (вымярэнне wst-near). [34]
Вымярэнне падгіменіяльнай зоны: 50–70 µm (вымярэнне wst-far). [34] - Размяшчэнне клетак агульнага покрыва
- Размяшчэнне клетак агульнага покрыва: канцавыя (на шапачцы). [34]
Размяшчэнне клетак агульнага покрыва: кароткімі радамі (на шапачцы). [34]
Скурка шапкі
- Аптычны выгляд гіф скуркі шапкі
- Аптычны выгляд гіф скуркі шапкі: гіялінавы (верхні слой скуркі шапкі). [36]
- Размяшчэнне гіфаў скуркі капялюшыка
- Размяшчэнне гіфаў скуркі капялюшыка: амаль радыяльнае. [34]
- Форма элементаў скуркі капялюшыка
- Форма элементаў скуркі капялюшыка: цыліндрычны. [36]
Форма элементаў скуркі капялюшыка: цыліндрычны. [36] - Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: 1,1–7,7 µm. [34]
Шырыня элементаў скуркі капялюшыка: 0,8–3 µm. [36]
Шырыня элементаў скуркі капялюшыка: 2,5–4 µm. [36] - Галінаванне гіфы скуркі
- Галінаванне гіфы скуркі: разгалінаваны. [34]
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны. [36]
Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны (толькі каля паверхні, у паверхневым слаі скуркі шапачкі). [34]
Размяшчэнне гіф скуркі ў гелепадобным рэчыве: без жэлацінізацыі (у ніжнім слаі скуркі шапачкі). [34]
Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны (толькі каля паверхні, у паверхневым слаі скуркі шапачкі, у спелага пладовага цела). [34] - Колер пігменту скуркі
- Колер пігменту скуркі: карычневы. [34]
Рэакцыі з рэактывамі
Споры
- Сярэднія суадносіны даўжыні і шырыні споры
- Сярэднія суадносіны даўжыні і шырыні споры: 1,04 (сярэдняе значэнне). [32]
- Профіль адаксіяльнага боку базідыяспоры
- Профіль адаксіяльнага боку базідыяспоры: спляшчаны. [34]
- Наяўнасць прыдатка рубчыка базідыяспоры
- Наяўнасць прыдатка рубчыка базідыяспоры: наяўны. [34]
- Размяшчэнне атожылка рубчыка базідыяспоры
- Размяшчэнне атожылка рубчыка базідыяспоры: амаль бакавы. [34]
- Форма адростка рубчыка базідыяспоры
- Форма адростка рубчыка базідыяспоры: цыліндрычны. [34]
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: гіялінавы. [36]
Колер спор пад мікраскопам: гіялінавы. [34] - Даўжыня споры
- Даўжыня споры: 9,7–15,4 µm. [36]
Даўжыня споры: 10,5–14 µm. [10]
Даўжыня споры: 9,5–25 µm. [34] - Наяўнасць ліпідных цельцаў
- Наяўнасць ліпідных цельцаў: наяўны. [36]
- Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 0,94–1,14. [36]
Суадносіны даўжыні і шырыні споры: 1–1,36. [34] - Форма споры
- Форма споры: шарападобны. [10]
Форма споры: шарападобны. [9]
Форма споры: амаль шарападобны. [9]
Форма споры: шарападобны. [36]
Форма споры: шарападобны (амаль). [36]
Форма споры: шарападобны. [34]
Форма споры: шарападобны (амаль). [34] - Аб'ём споры
- Аб'ём споры: 410–2030 µm³. [36]
- Таўшчыня сценкі споры
- Таўшчыня сценкі споры: танкасценны. [34]
Трама гіменафора
Матэрыял і метады даследаванняў
Апісанне прымет — крыніца і абсяг
Матэрыял: Атласны апіс мякаці К. Тэйкала/ČMS; пах nevýrazný.
Ахоп прачытання: Дакументаванае назіранне.
Абмежаванні: Апісанне аўтара без нумара даследаванай пробы; нявыразны пах не атаясамліваўся з хімічнай адсутнасцю пахучых рэчываў.
Мікраскапічныя даныя — крыніца і абмежаванні
Матэрыял: СярэдняеQ спораў выбаркі 4813,100 вымярэнняў аўтара M.Zugny; той жа матэрыял, што і асобнае мікраскапічнае даследаванне, не новы эксперымент.
Ахоп прачытання: Дакументаванае назіранне.
Абмежаванні: Сярэдняе прыведзена непасрэдна аўтарам; незалежныя межы даўжыні і шырыні не падзяляліся.
Даследаванне складу і актыўнасці — Akata і інш. (2012)
Матэрыял: Пладовыя целы з Анатоліі, вызначаныя як Amanita ceciliae, AKATA 3037,850 m; метанольны экстракт высушанага матэрыялу. Проба DPPH,517 nm,30 min у цемры; тры паўторы.
Ахоп прачытання: Дакументаванае назіранне.
Абмежаванні: Вынік in vitro, не пацверджанае лячэнне або бяспечная харчовая доза. Адсутнасць у гэтай працы малекулярнай верыфікацыі вызначэння; не польскі матэрыял. Анатацыя мае супярэчлівае прыпісванне 96,16% пры 4,51 mg/ml; непасрэдна прачытаны радок дае 95,35 ± 0,10% пры 4,65 mg/ml.
Archiwalny opis siedliska
Krajowe zbiory udokumentowano m.in. w Beskidzie Niskim (okolice Chyrowej, Myscowej, Woli Niżnej i Tylawy) w drzewostanach jodłowo-bukowych z domieszką grabu, leszczyny i wiązu.
[10]Obecność gatunku potwierdzają również historyczne zbiory zielnikowe z lasów grądowych Puszczy Niepołomickiej.
[11]Archiwalny opis siedliska
W Europie Środkowej owocnikowanie trwa od czerwca do października, a grzyb występuje miejscami obficie w ciepłolubnych lasach dębowych i bukowych.
[6]- Вынікі, пададзеныя ў крыніцах — Колькасць спор на базідыі
- Liczba zarodników na jednej podstawce wynosi 2. [36] [34]
Liczba zarodników na jednej podstawce wynosi 4. [36] [34] - Вынікі, пададзеныя ў крыніцах — Шырыня гіфы агульнага пакрывала
- Strzępka osłony całkowitej może mieć szerokość od 1,1 do 11,7 mikrometra. [34]
Strzępka osłony całkowitej może mieć szerokość od 2,5 do 4,5 mikrometra. [36]
Metody i zapisy źródłowe — Zbiór 4813, Prato Rotondo koło Teramo, Włochy, 19.08.2012, leg. Bruno de Ruvo, det. Marino Zugna. Suchy materiał rehydratowano wodą lub KOH 5%; preparaty w wodzie albo amoniakalnej czerwieni Kongo 6%. Nowy wynik dotyczy wyłącznie strzępek zewnętrznego pokrycia opisanego jako ixocutis, nie pigmentowanej warstwy cutis.
Wygląd optyczny strzępek skórki — zapis źródłowy: „Rivestimento pileico ... ixocutis ... ife cilindriche ... ialine; tylko strzępki tego pokrycia.” [36]
Metody i zapisy źródłowe — Wyłącznie zbiór E. W. Brown, Middleton, Dyfed, Walia, 20.09.1994, RET270-1. Cała skórka ma 155–220 µm; opis źródłowy oddziela powierzchnię, suprapellis i subpellis. Grubości poszczególnych warstw nie utożsamiono z grubością całości.
Układ strzępek skórki — zapis źródłowy: „In E. W. Brown collection: filamentous undifferentiated hyphae subradially arranged.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: completely gelatinized only at surface; zakres przestrzenny ograniczony do powierzchni.” [34]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In E. W. Brown collection: subpellis ... ungelatinized; dokładny wynik ujemny wyłącznie tej warstwy.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In E. W. Brown collection: pileipellis 155–220 µm thick; cała skórka.” [34]
Metody i zapisy źródłowe — Rewizja europejskich eksykatów R.E.Tullossa: 100pomiarów z5owocników i4zbiorów. Lista materiału obejmuje Perreau475(Francja),BrownRET270-1(Walia),KibbyRET270-2(Anglia),Gminder96/141=RET305-4(Niemcy) i historyczny materiał Berkeley. Wymiary zbiorcze nie zostały przypisane jednemu z tych okazów.
Długość sterygmy podstawki — zapis źródłowy: „Do8,4µm długości; szerokość3,1µm oczekuje osobnego pola.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki4sterygmowe i rzadko2sterygmowe.” [34]
Profil adaksjalnej strony bazydiospory — zapis źródłowy: „Spłaszczone od strony adaksjalnej” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Podboczny” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Wyrostek opisany wprost” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Cylindryczny” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne potwierdzone granice, z zachowaniem zakresów centralnych i zbiorczych średnich w źródle.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Bilateralna” [34]
Szerokość strzępek tramy — zapis źródłowy: „Nitkowate strzępki2,8–5,9µm; nie zakres naczyniowych2,8–23µm.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do74µm; nie przepisano tego wymiaru strzępkom naczyniowym.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Do16,7µm, własna szerokość opisanych komórek.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bezbarwne, hialinowe, bez określonego medium.” [34]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie” [34]
Grubość ściany zarodnika — zapis źródłowy: „Cienkościenne” [34]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Nitkowate strzępki osłony” [34]
Metody i zapisy źródłowe — Włochy,Teramo,PratoRotondo,19.08.2012,1460m,las bukowy Fagus sylvatica,zbiór4813; leg.B.deRuvo,det.M.Zugna. Suchy materiał rehydratowano5%KOH lub wodą; preparaty w wodzie lub6%amoniakalnej czerwieniKongo. Mycométre,100dojrzałych zarodników z niehymenialnych części w projekcji bocznej; pozostałe typy komórek po co najmniej20pomiarów.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Zwykle4zarodnikowe, rzadko2zarodnikowe; określenie dotyczy wyłącznie własnej liczby.” [36]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Objętość zarodnika; Szerokość zarodnika — zapis źródłowy: „Pełne źródłowe min–max, wraz z granicami w nawiasach; zakresy centralne i średnie zachowano w odczycie oryginału.” [36]
Kształt podstawki — zapis źródłowy: „Maczugowate; bardzo wydłużone jako odrębna potrzeba modelu.” [36]
Płodność ostrza blaszek — zapis źródłowy: „Ostrze blaszki sterylne; nie brzeg porów.” [36]
Kształt elementów skórki kapelusza — zapis źródłowy: „Strzępki cylindryczne” [36]
Szerokość elementów skórki — zapis źródłowy: „Odrębny zakres własnej warstwy” [36]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Ixocutis, osadzenie w zżelatynizowanej warstwie; bez zgadywania stopnia.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Ixocutis: organizacja cutis, zżelatynizowanie nie jest osobnym łącznym kodem.” [36]
Organizacja skórki kapelusza — zapis źródłowy: „Cutis” [36]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Hialinowe; medium tej ogólnej oceny nie przypisano odrębnie.” [36]
Obecność ciał lipidowych — zapis źródłowy: „Autor rozpoznaje centralną kroplę olejową” [36]
Kształt zarodnika — zapis źródłowy: „Kuliste do niemal kulistych; określenie przy własnym kształcie.” [36]
Kształt komórki osłony całkowitej — zapis źródłowy: „Sferocyty; średnicy17–40µm nie przepisano jako dwóch osi.” [36]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Średnica nitkowatych strzępek” [36]
Metody i zapisy źródłowe — Rewizja europejskiego materiału R. E. Tullossa. Pomiary subhymenium i sterygm oraz opis osłony są wynikami zbiorczego opisu źródła; nie przypisano ich samowolnie jednemu okazowi. Wskazane w źródle N=100 dotyczy zarodników, nie tych nowych pomiarów.
Szerokość sterygmy — zapis źródłowy: „Technical, basidia: sterigmata up to 8.4 × 3.1 µm; wyłącznie szerokość, brak dolnej granicy.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-near = 15–35 µm.” [34]
Pomiar strefy podhymenialnej — zapis źródłowy: „Technical, subhymenium: wst-far = 50–70 µm; inna miara niż wst-near.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; położenie końcowe komórek.” [34]
Układ komórek osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: terminal singly and in chains of up to 3 cells; krótkie szeregi. Liczba do 3 pozostaje w dokumentacji do osobnego rozszerzenia.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: globose to subglobose to pyriform; zapis tylko jawnego podstawowego kształtu globose.” [34]
Kształt komórki osłony całkowitej — zapis źródłowy: „Technical, universal veil on pileus: ellipsoid to subclavate; zapis wyłącznie jawnego ellipsoid, bez utraty kwalifikatora przez dopisanie clavate.” [34]
Metody i zapisy źródłowe — Wyłącznie zbiór E.W.Brown,Middleton,Dyfed,Walia,20.09.1994,RET270-1. Opis skórki odróżnia powierzchnię,częściowo zżelatynizowaną suprapellis i niezżelatynizowaną subpellis z brązowym pigmentem wewnątrz komórek.
Szerokość elementów skórki — zapis źródłowy: „Zwykłe strzępki1,1–7,7µm” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Rozgałęzione” [34]
Barwa pigmentu skórki — zapis źródłowy: „Brązowy pigment subpellis; położenie wewnątrzkomórkowe zapisane przy dokładnym celu.” [34]
Metody i zapisy źródłowe — Wyłącznie Perreau 475. Autor podaje w pełni rozwinięty okaz pozostawiony na publicznym pokazie przed dokładnym wysuszeniem. Skórka 65–95 µm i pełne zżelatynizowanie tylko powierzchni. Nie połączono tego okazu z kolekcją E. W. Browna.
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „In Perreau 475: completely gelatinized only at surface; dokładny inny okaz.” [34]
Grubość skórki kapelusza — zapis źródłowy: „In Perreau 475 (fully expanded specimen left on public display before thorough drying): pileipellis 65–95 µm thick.” [34]
Metody i zapisy źródłowe — Marek Snowarski/GRej, Amanita ceciliae
Kształt zarodnika — zapis źródłowy: „Kuliste i przejrzyste w opisie mikroskopowym; opis barwy zapisano też osobno od wysypu.” [10]
Powierzchnia zarodnika — zapis źródłowy: „Gładka.” [10]
Szerokość zarodnika — zapis źródłowy: „GRej: pełna para10,5–14×10–14 µm; druga oś10–14 µm.” [10]
Metody i zapisy źródłowe — Pat O’Reilly/FirstNature, Snakeskin Grisette
Назвы і межы віду
Польская назва: Muchomor złotawy — назва, якая выкарыстоўваецца ў польскім спісе Wojewody 2003. Аўтар адсылае да Borowskiej і Skirgiełło ў Garnweidnerze 1993; больш ранняе выданне не чыталася. Спіс захоўвае таксама гістарычную назву Domańskiego 1955 a. Шэсць назваў з атласа Ekologia.pl запісаны як альтэрнатыўныя з атласным паходжаннем. Гэта не робіць іх афіцыйнымі назвамі і не пацвярджае даўніх нявырашаных этыкетак запісу.
Першасныя публікацыі: Berkeley і Broome апісалі Agaricus ceciliae у 1854 г., пазіцыя 663, с. 396–397. Bas у 1984 г., с. 192, пасля праверкі тыпавога матэрыялу ў Kew утварыў камбінацыю Amanita ceciliae. Год 1984 прачытаны ў самой публікацыі; ранейшая разбежнасць 1983/1984 застаецца ў гісторыі. Bas аддзяліў памылковыя пазнейшыя ўжыванні назвы strangulatus ад першапачатковага апісання Fries 1838, датычнага іншага, нявырашанага віду. Сапраўдны Agaricus strangulatus не дадаваўся як просты сінонім.
Абсяг таксона і матэрыял па-за Еўропай: Апрацоўка датычыцца еўрапейскага разумення Amanita ceciliae, у тым ліку асобна задакументаванага венгерскага экзэмпляра DB-2018-07-08-5/AD22. Гэта не азначае паўторнага вызначэння ўсіх атласных экзэмпляраў або атаясамлівання мексіканскага, гватэмальскага матэрыялу aff. ceciliae ці A. sororcula з еўрапейскім матэрыялам. Lambert і суаўтары вылучылі з даўніх паўночнаамерыканскіх вызначэнняў A. rhacopus і A. variicolor на падставе марфалогіі, тыпаў і ITS. Абмежаванне датычыцца таксама пераносу фотаздымкаў, паведамленняў пра атручванні і звестак пра спажыванне.
Польскае пашырэнне і плоданашэнне
Пашырэнне і месяцы: Wojewoda прыводзіць польскія месцазнаходжанні, у т.л. з наваколляў Эльблёнга, Велікапольскага НП, Кампінаса, Глогава, Дэмбоўца, Анапаля, Бабінай Гары, Пянінаў і Палесся, а таксама тэрмін чэрвень–кастрычнік. Гэта агляд літаратуры, а не новы маніторынг усёй Польшчы. GRej змяшчае далейшыя, відавочна пазначаныя польскія назіранні. Месяцы ўнесены з польскага спісу; адзінкавыя даты збораў не пералічваліся на межы сезона.
Месцапражыванне і асцярожнасць інтэрпрэтацыі: Польскі спіс пералічвае глебу ў лісцевых, хвойных і мяшаных лясах, таксама пад елкай. Snowarski апісвае перавагу вапнавых глеб і нячастыя знаходкі. Прысутнасць каля дрэва не была пераўтворана ў малекулярны доказ мікарызнай сувязі. Гістарычная катэгорыя рэгіянальнай пагрозы не з'яўляецца бягучай нацыянальнай прававой аховай. Замежныя месяцы ці статусы чырвоных спісаў не замяняюць польскіх даных.
Даследаванне італьянскага збору 4813
Матэрыял і метад: Збор ад 19.08.2012 паходзіць з букавага лесу каля PratoRotondo, Teramo, 1460 м; сабраў яго Bruno de Ruvo, вызначыў Marino Zugna. Макраапісанне складзена па фотаздымках. Сухі матэрыял рэгідратавалі вадой або 5%KOH; прэпараты праглядалі ў вадзе альбо 6%аміячнай чырваніКонга. Рэактыў Мельцэра служыў для ацэнкі амілоіднасці. Вымерана 100 спелых спор з негіменіяльных частак у бакавой праекцыі; астатнія тыпы клетак — не менш чым па 20 разоў. Адзінае асяроддзе не прыпісвалася ўсім вымярэнням.
Вынікі: Поўныя межы спор складаюць 9,7–15,4×8,9–15,8 µm, Q0,94–1,14, сярэдняеQ 1,04, аб'ём 410–2030 µm³. Яны шарападобныя да амаль шарападобных, гіялінавыя, неамілоідныя, з адной вялікай цэнтральнай алейнай кропляй. Базідыі маюць 38,63–68,53×10,39–16,33 µm, звычайна 4, а рэдка 2 споры. Пражкі ў даследаваных тканках не назіраліся. Цэнтральныя дыяпазоны, сярэднія і зыходныя засцярогі захаваны пры арыгінале.
Абмежаванні: Гэта ўласныя назіранні аўтара, апублікаваныя зборшчыкам у блогу; ранейшая версія forumAMB не чыталася. Экзэмпляр не з'яўляецца польскім вымярэннем. Два пласты скуркі маюць асобныя дыяпазоны шырыні гіф; з іх не стваралі адзінага безумоўнага дыяпазону. Адсутнасць назіранняў маргінальных клетак не з'яўляецца доказам адсутнасці ўсіх цыстыд.
Рэвізія еўрапейскіх эксікатаў
Матэрыял і вынік: Tulloss прыводзіць 100 вымярэнняў з 5 пладовых цел і 4 збораў. Поўныя межы спор — гэта 9,5–25×8,6–25 µm, пры больш вузкіх цэнтральных дыяпазонах 10,3–14,9×9,5–14,3 µm; крыніца выразна згадвае нешматлікія гіганцкія споры. Базідыі 65–89×13,8–19,1 µm з'яўляюцца 4-стэрыгмавымі або рэдка 2-стэрыгмавымі. Асяроддзе кожнага вымярэння не пазначана. Нататкі Bas пра тып не ператваралі ў незалежнае ўласнае даследаванне Tulloss.
Дакладныя часткі: Трама пласцінак білатэральная. Звычайныя гіфы 2,8–5,9 µm адрозніваліся ад сасудзістых 2,8–23 µm. Выцягнутыя клеткі асновы субгіменія дасягаюць 74×16,7 µm. Асобна апісаны збор E.W.Brown, RET270-1, Уэльс, 20.09.1994, мае гіфы скуркі 1,1–7,7 µm і ўнутрыклеткавы карычневы пігмент subpellis. Гэтыя ўласцівасці не пераносіліся безумоўна на ўсе пласты і калекцыі.
Што застаецца ў дакументацыі: Падбакавы цыліндрычны адростак рубчыка, адаксіяльнае сплюшчванне і тонкая сценка адносяцца да базідыяспоры. Рэдкая шырокаэліпсаідальная форма патрабуе адсутнага кваліфікатара частаты. Ступень жэлацінізацыі, таўшчыні пластоў, розныя формы і сценкі клетак пакрывала захоўваюць асобныя кантэксты; іх не замянялі адвольнай ступенню „моцны”.
Малекулярныя даныя і зыходны матэрыял
Еўропа: Varga і інш. (2024), табліца 1, прыводзяць уласны венгерскі экзэмпляр DB-2018-07-08-5(AD22) з Zubogy: ITS PP375773, LSU PP375268, RPB1 PP358526 і TEF1α PP273683. Французскі JMM20180914, ITS MN490692, спасылаецца на Hanss і Moreau 2020; дацкі JV05-394, ITS UDB002315, пазначаны як неапублікаваны. Радкі не з'яўляюцца трыма незалежнымі даследаваннямі аднаго і таго ж польскага ўзору. Правільная метрыка працы — гэта Mycological Progress 23, артыкул 38; не 63.
Іран: Праца Resources of Iranian agarics(2022) пералічвае для A. ceciliae ITS OK299150 і LSU OK299170. У табліцы антыаксідантнага патэнцыялу пры гэтым відзе стаіцьND. Гэтая табліца не разглядалася як новае вызначэнне актыўнасці экстракту, і іранскія вынікі не падстаўляліся да польскага сезона. Паслядоўнасці з'яўляюцца ідэнтыфікатарамі, прыведзенымі аўтарамі; уласнага спампоўвання і паўторнага выраўноўвання паслядоўнасцей тут не праводзілася.
Ядомасць і доказы шкоднасці
Ацэнкі і іх аснова: ČMS ацэньвае від як ядомы з невялікай кулінарнай каштоўнасцю. Дыдактычны матэрыял SFMU змяшчае назву Amanita inaurata сярод грыбоў, таксічных у сырым або недавараным выглядзе, і пазначае зорачкай гемалізіны. Гэты запіс не змяшчае спецыфічнага аналізу таксіну даследаванага экзэмпляра, індывідуальнай серыі пацыентаў або валідаванага часу і тэмпературы апрацоўкі. Ацэнкі аўтараў запісаны з іх умовамі; яны не з'яўляюцца вынікам клінічнага даследавання.
Паведамленне з Мантаны: Рэестр NAMA прыводзіць адзін выпадак у дарослага, пазначаны Amanita inaurata, Мантана, пачатак 0,6 г, страўнікава-кішачныя сімптомы, потлівасць, ністагм і затуманенасць зроку. Зводка не даказвае тоеснасці з еўрапейскім A. ceciliae і не прадстаўляе для гэтага радка поўнага індывідуальнага расследавання прычыннасці. Паведамленне не было прапушчана, але з яго не выводзілася таксічнасць правільна вызначанага польскага матэрыялу.
Абмежаванне агляду: У правераных крыніцах не атрымана першаснага, спецыфічнага для еўрапейскага віду аналізу гемалізінаў або поўнай клінічнай серыі, якая вырашае пытанне бяспекі. Гэта не з'яўляецца доказам адсутнасці такіх даследаванняў. Не дапісваліся аматаксiны, мусцымол або гарантыі абясшкоджвання.
Склад і эксперымент з экстрактам
Матэрыял і метады: Akata і інш. (2012) даследавалі анаталійскія пладовыя целы, пазначаныя як A. ceciliae, AKATA 3037,850 m. Экстракт высушанага матэрыялу рыхтавалі метанолам. Выкананы тэст DPPH са счытваннем 517 нм пасля 30 хв у цемры, тры паўторы. Бялок вызначалі метадам К'ельдаля, каэфіцыент 6,25. Верыфікацыі ДНК вызначэння не прыведзена.
Счытванне табліц: Радок табліцы 2 прыводзіць 4,65 мг/мл экстракту, выхад 23,2% і RSA 95,35 ± 0,10%. Рэзюмэ злучае назву віду з 96,16% і 4,51 мг/мл, тады як табліца і апісанне вынікаў звязваюць гэтыя другія лікі з Armillaria mellea. Запісаны счытаны радок разам з разыходжаннем. Табліца 3: попел 10,75%, тлушч 5,91%, вільготнасць 9,34%, бялок 31,20%, вугляводы 42,81%; асобна не вызначае нармалізацыю адносна сухой або свежай масы.
Значэнне: Гэта хімічная актыўнасць in vitro, а не даказанае лячэнне, харчовая доза або тэхналагічнае ўкараненне. Вынік актыўнасці і канцэнтрацыя адносяцца да аднаго і таго ж эксперыменту, хоць тыпы запісаў мадэлі з'яўляюцца асобнымі. Адсутныя колькасныя параметры і непададзеная аснова складу захаваны для пашырэння мадэлі.
Пошук іншых ужыванняў і шлях спасылак
Абсяг пошуку: Правераны лячэбныя, зёлкавыя, тэхнічныя, фарбавальныя, прыпраўныя, культурныя і біятэхналагічныя прымяненні пад назвамі ceciliae і inaurata. Счытаныя першасныя крыніцы пацвярджаюць даследаванне экстракту і таксанаміі; яны не паказваюць укаранення, лячэння чалавека або вытворчасці лекаў. Традыцыйнае выкарыстанне не выключалася толькі адсутнасцю даследаванняў.
Нявырашаныя сляды: Пошук паказаў пакістанскую зводку Sultana і Qureshi 2007, якая апісвае назву ceciliae як medicinal. Поўная крыніца не была атрымана: сервер вярнуў памылку 500. З фрагмента табліцы не выводзіліся мэта прымянення, доза або тоеснасць еўрапейскага віду. Паведамленні, пазначаныя aff.ceciliae з Гватэмалы, і старэйшыя мексіканскія назвы таксама не былі аўтаматычна атаясамлены з еўрапейскім відам. Дакладныя запыты і статусы захаваны ў дакументацыі.
Дапаўненне пасля пашырэння агульнай мадэлі
Стэрыгмы і субгіменій: У зводным еўрапейскім апісанні Tulloss шырыня стэрыгмы дасягае 3,1 мікраметра. Ніжняй мяжы не прыведзена. Падгіменіяльная зона вымерана асобна ў кропках wst-near (15–35 мікраметраў) і wst-far (50–70 мікраметраў). Гэта два розныя вымярэнні крыніцы; з іх не ствараўся дыяпазон 15–70 мікраметраў. Колькасць слаёў застаецца асобнай інфармацыяй, якая патрабуе пашырэння мадэлі.
Скурка шапкі — асобныя калекцыі: Скурка збору E. W. Brown мае таўшчыню 155–220 мікраметраў, а скурка спелага экзэмпляра Perreau 475 мае 65–95 мікраметраў. Гэты другі экзэмпляр пакінулі на выставе перад высушваннем. Калекцыі не змешваліся, і таўшчыня ўсёй скуркі не прыпісвалася яе асобным слаям. У абодвух аўтар апісвае гель каля самой паверхні, а ў Brown — яўна незажэлацінізаваную subpellis і субрадыяльнае размяшчэнне звычайных гіфаў. Гіялінавасць у зборы Zugna тычыцца выключна пакрыцця ixocutis, а не пігментаванага слоя cutis.
Клеткі пакрывала: У апісанні пакрывала на шапцы Tulloss пералічвае ў тым ліку шарападобныя і эліпсоідныя клеткі, а таксама іх канцавое становішча і кароткія ланцужкі. Запіс гэтых частак інфармацыі не замяняе адсутных азначэнняў «амаль», грушападобнай формы, долі клетак адносна гіфаў ці асобнага лічыльніка да трох клетак у ланцужку. Пакрывала каля асновы ножкі збору Zugna захоўвае свой асобны дыяпазон.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Polskie opublikowane stanowiska odnotowane przez Wojewodę 2003 oraz źródłowe rekordy GRej.
Абсяг счытвання: Дакументаванае назіранне.
Дата агляду: 19.10.2026.
Абмежаванні: Гэта агляд апублікаваных вызначэнняў; паўторнага вызначэння матэрыялу або генатыпавання не праводзілася.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Udokumentowany zbiór z województwa podkarpackiego.
Абсяг чытання: Фрагменты крыніц.
Прачытаны фрагмент крыніцы; поўны тэкст і метады не правяраліся.
Дата прагляду: 21.10.2026.
Абмежаванні: Крынічнае вызначэнне і абсяг паняцця захаваны. Не дэкларавалася новае даследаванне ўзораў або чытанне ўсіх публікацый, цытаваных крыніцай.
Абсяг распрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўрэгулявання.
- Пошук рэгіёнаў распаўсюджвання патрабуе разліку.
Прававая аснова і абсяг ацэнкі
Аналітычныя вынікі
Склад і лабараторная актыўнасць
- Актыўнасць даследаванага экстракту
- Актыўнасць даследаванага экстракту: антыаксідантная актыўнасць (экстракт, актыўнасць выяўлена, метанольны экстракт пладовых цел AKATA3037). [32]
- Канцэнтрацыя экспазіцыі даследаванага матэрыялу
- Канцэнтрацыя экспазіцыі даследаванага матэрыялу: 4,65 mg/ml (DPPH, экстракт, метанольны экстракт пладовых цел AKATA3037, прыведзенае значэнне). [32]
Найважнейшыя рэчывы і іх дзеянне
Найважнейшыя рэчывы і іх дзеянне
У лабараторных даследаваннях, праведзеных на метанольных экстрактах з высушаных пладовых цел, аналізаваліся хімічны склад і антыаксідантныя ўласцівасці тканак.
Найважнейшыя рэчывы і іх дзеянне
Экстракты з пладовых цел прадэманстравалі здольнасць нейтралізаваць свабодныя радыкалы ў тэсце DPPH.
Найважнейшыя рэчывы і іх дзеянне
Экстракты з пладовых цел выявілі ў лабараторных умовах антыаксідантную актыўнасць на ўзроўні 95,35 ± 0,10% пры канцэнтрацыі экстракту 4,65 mg/ml.
Найважнейшыя рэчывы і іх дзеянне
Біяхімічны аналіз сухой масы паказаў утрыманне 31,20% бялку, 42,81% вугляводаў, 5,91% тлушчу і 10,75% попелу пры рэшткавай вільготнасці 9,34%.
Найважнейшыя рэчывы і іх дзеянне
Антыаксідантная актыўнасць экстрактаў, даследаваная ў лабараторных умовах, не з'яўляецца пацвярджэннем лячэбных уласцівасцей пры ўжыванні грыба ў ежу.
Найважнейшыя рэчывы і іх дзеянне
Даследаванні генетычных паслядоўнасцей у межах секцыі Vaginatae пацвярджаюць адасобленасць еўрапейскіх эвалюцыйных ліній мухамора залацістага.
Асяроддзе пражывання і распаўсюджанне
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Утварэнне пладовых цел | Крыніцы |
|---|---|---|---|
| Польшча | Падкарпацкае ваяводства | VI–X |
|
Крыніцы
- Ekologia.pl, Muchomor złotawy — polski atlas, nazwy alternatywne i sezon (także [22])
- GBIF-COL-5TZDD
- W2-CECILIAE-NAMES
- Akata I., Ergonul B., Kalyoncu F. 2012, IJP8(2): 134–138, DOI 10.3923/ijp.2012.134.138 (także [19])
- Karel Tejkal/Česká mykologická společnost, Amanita ceciliae (także [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Pat O’Reilly/FirstNature, Snakeskin Grisette (także [23])
- Marek Snowarski/GRej, Amanita ceciliae (także [24])
- KRAM47383/PAN, metadane vouchera
- Lambert i in. 2018, MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- NCBITaxonomy67696
- Varga D. i in. 2024, DOI 10.1007/s11557-024-01974-0
- WildFoodUK, Snakeskin Grisette
- Akata i in. 2012 — oryginalny obraz tabeli1
- Akata i in. 2012 — oryginalny obraz tabeli2
- Akata i in. 2012 — oryginalny obraz tabeli3
- Cornelis Bas 1984, On the correct name of Amanita inaurata Secr., Persoonia12(2): 192–193
- Resources of Iranian agarics (Basidiomycota) with an outlook on their antioxidant potential,2022, pełny XML EuropePMC, PMC9650231
- H.Lambert i in. 2018, Validation of two Amanita species from eastern North America: A.rhacopus sp.nov. and A.variicolor sp.nov., MycoKeys38:47–57, DOI 10.3897/mycokeys.38.27041
- Muchomor złotawy — weryfikacja polskich wykazów
- M.Beug, M.Shaw i K.Cochran 2006, Thirty-plus Years of Mushroom Poisoning: Summary of the Approximately 2000 Reports in the NAMA Case Registry, McIlvainea16(2): 47–68
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- M.J.Berkeley i C.E.Broome 1854, Notices of British Fungi, Ann.Mag.nat.Hist.Ser.2,13:396–407, pozycja663, s.396–397, DOI 10.1080/03745485709496362
- SFMU, materiał dydaktyczny Champignons pod kierunkiem V.Danela, rewizja grudzień 2019
- Muchomor złotawy — czytelny opis materiału i źródłowe wyniki
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- R.E.Tulloss, Amanitaceae.org, Amanita ceciliae — własna rewizja materiału europejskiego; kopia serwisu Dikarya
- Władysław Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.45(PDF47), Amanita ceciliae
- Marino Zugna, opis i badanie zbioru4813 z 19.08.2012, publikacja Bruno de Ruvo na Funghi Teramani 15.03.2015