
Їстівний

Установіть місцезнаходження, щоб побачити дані для свого регіону.
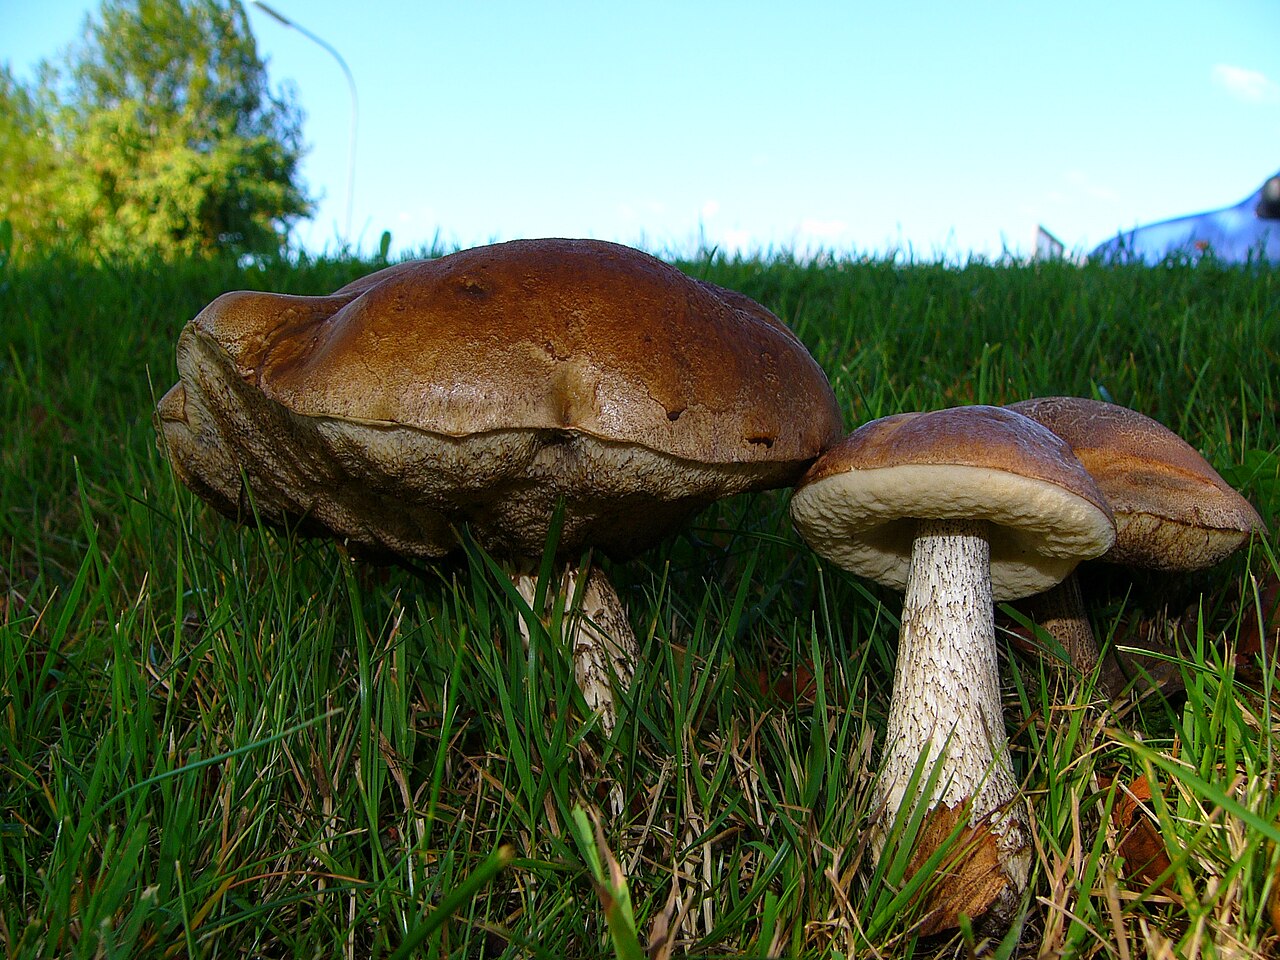
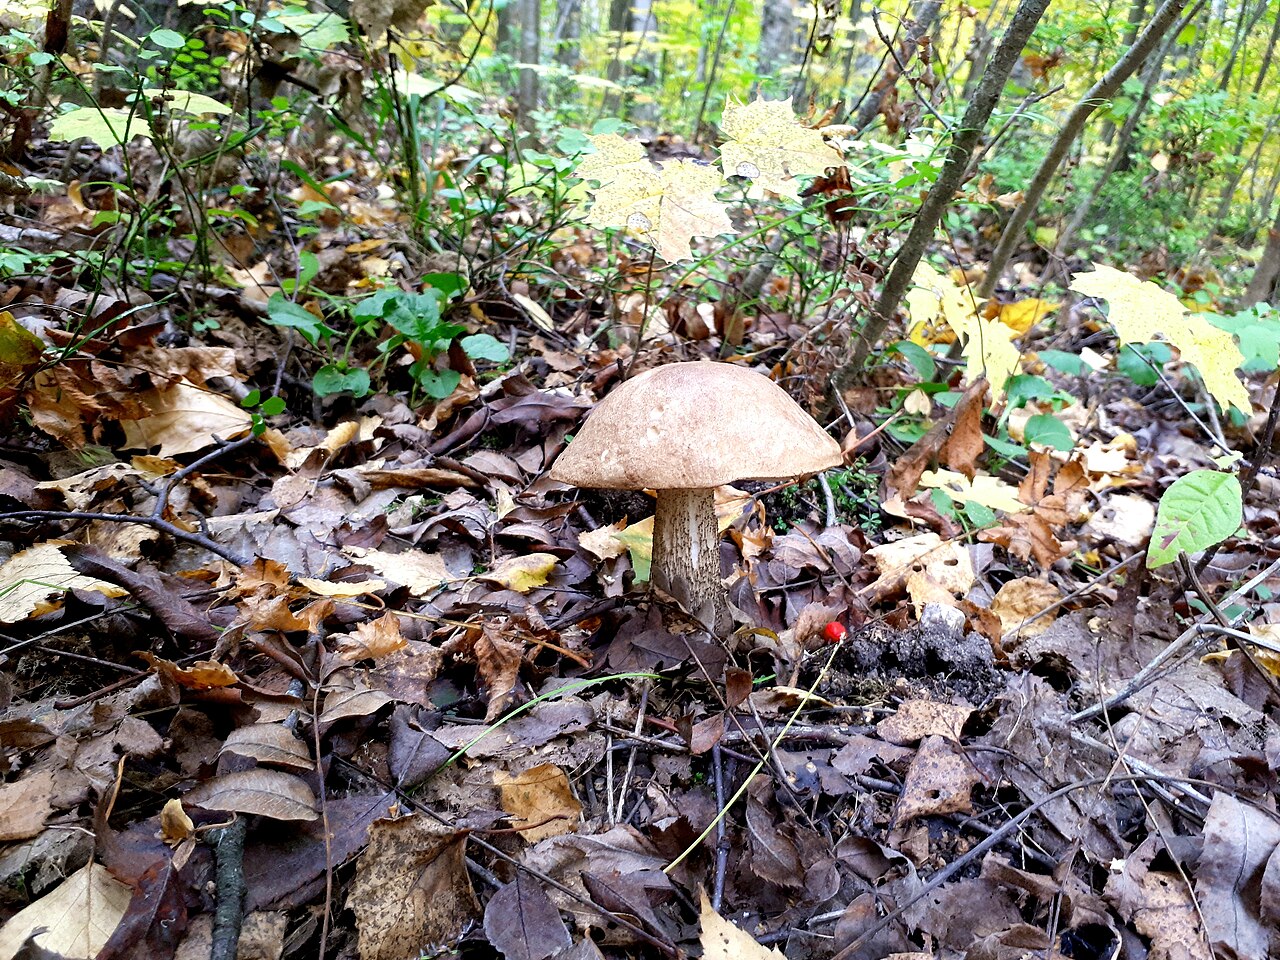
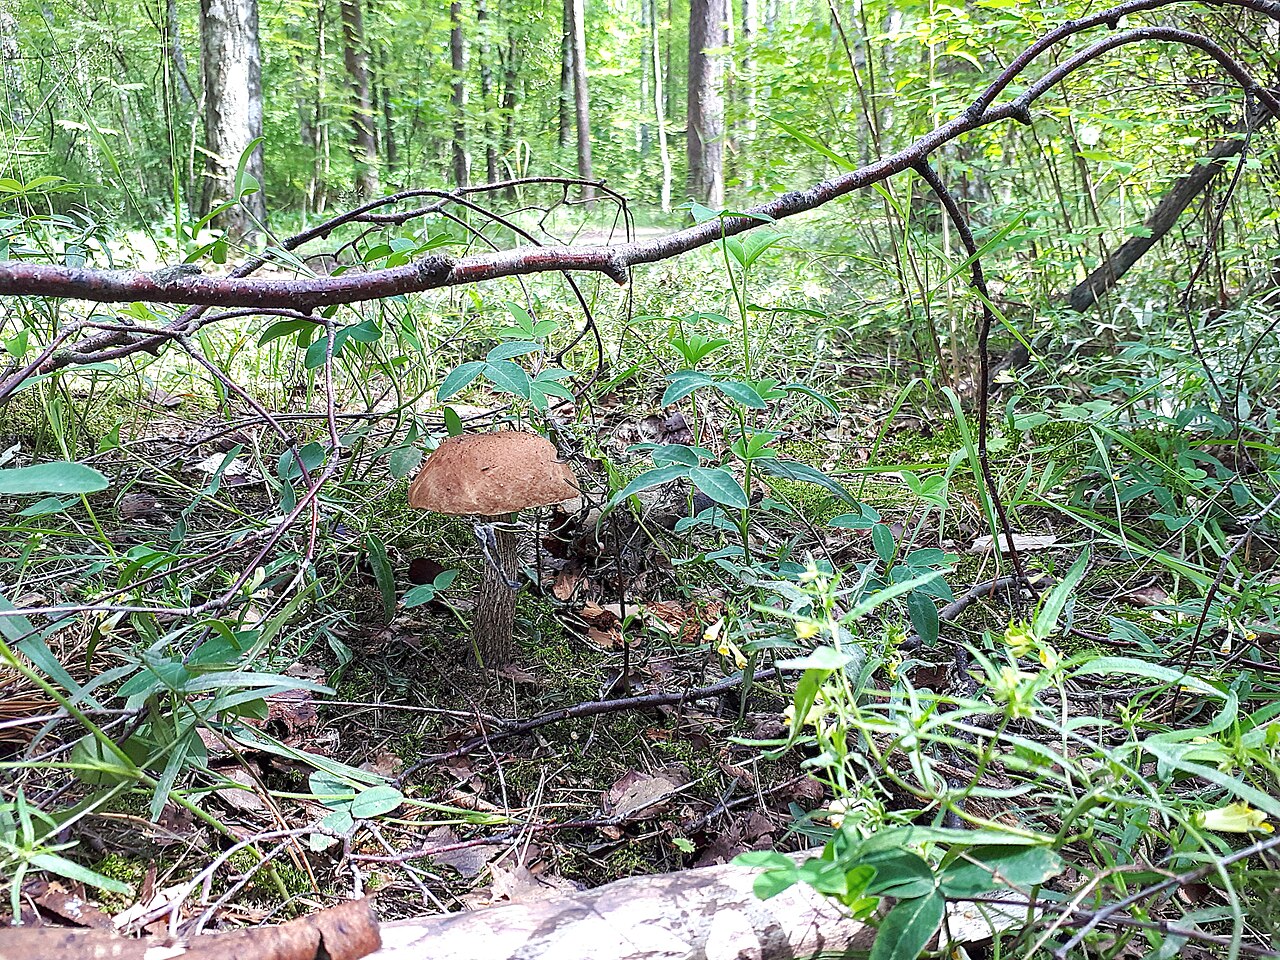
Підберезовик звичайний (Leccinum scabrum) — це поширений у Польщі їстівний гриб, що утворює мікоризу з березами. Трапляється в листяних і мішаних лісах від літа до осені. Шапинка подушкоподібна, у відтінках сірого, коричневого або вохристого кольору, із сухою і гладенькою поверхнею. Гіменофор утворений дрібними трубочками з білуватими порами, які з віком сіріють. Ніжка струнка, світла, вкрита темними лусочками. М'якуш білуватий і практично не змінює кольору після розрізання. Цінується за ніжний грибний смак.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
Шапинка
- Форма шапинки
- у молодих плодових тіл: Форма шапинки: напівкулястий.
у зрілих плодових тіл: Форма шапинки: опуклий.
у старих плодових тіл: Форма шапинки: плоский.
Форма шапинки: опуклий. - Покрив шапинки
- Покрив шапинки: замшева.
у молодих плодових тіл: Покрив шапинки: повстиста.
у зрілих плодових тіл: Покрив шапинки: гола.
у зрілих плодових тіл: Покрив шапинки: луската. - Клейкість і слизистість шапинки
- у мокрому стані: Клейкість і слизистість шапинки: липкий.
у мокрому стані: Клейкість і слизистість шапинки: слизистий. - Колір шапинки
- Колір шапинки: темно-коричневий.
Колір шапинки: жовто-коричневою.
Колір шапинки: коричневий.
Колір шапинки: вохристо-коричневий.
Колір шапинки: чорно-коричневий.
Колір шапинки: сіро-коричневий.
Колір шапинки: горіхово-коричневий.
Колір шапинки: червоно-коричневий. - Положення краю
- Положення краю: загнутий донизу.
Положення краю: загнутий усередину. - Виступ краю шапинки за межі гіменофора
- Виступ краю шапинки за межі гіменофора: не виступає за гіменофор.
Виступ краю шапинки за межі гіменофора: виступає за межі гіменофора. - Діаметр шапинки
- Діаметр шапинки становить 30–200 mm.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: трубочки.
Трубочки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (трубочки).
- Ширина приростання гіменофора
- Ширина приростання гіменофора: широко прирослий (трубочки).
- Колір пор після пошкодження
- Колір пор після пошкодження: коричнюватий.
- Природний колір пор
- у зрілих плодових тіл: Природний колір пор: сіро-коричневий.
у молодих плодових тіл: Природний колір пор: білий. - Природний колір трубочок
- у зрілих плодових тіл: Природний колір трубочок: сіро-коричневий.
у молодих плодових тіл: Природний колір трубочок: білувате.
Ніжка та основа
- Форма ніжки
- Форма ніжки: циліндричний.
Форма ніжки: булавоподібний. - Основа ніжки
- Основа ніжки: булавоподібна.
- Колір ніжки
- Колір ніжки: білувате.
Колір ніжки: жовтуватий.
Колір ніжки: світло-коричневий. - Рельєф поверхні ніжки
- Рельєф поверхні ніжки: борознистий.
- Покрив поверхні ніжки
- Покрив поверхні ніжки: луската.
- Колір орнаментації ніжки
- Колір орнаментації ніжки: чорнуватий.
Колір орнаментації ніжки: сіруватий.
Колір орнаментації ніжки: блідо-коричневий.
Колір орнаментації ніжки: чорний.
Колір орнаментації ніжки: сіро-коричневий. - Внутрішня будова ніжки
- Внутрішня будова ніжки: суцільний.
- Консистенція ніжки
- Консистенція ніжки: твердий.
Консистенція ніжки: волокнистий. - Довжина ніжки
- Довжина ніжки: 50–200 mm.
- Діаметр ніжки
- Діаметр ніжки: 10–55 mm.
М'якуш
- Колір м’якуша
- Колір м’якуша: білувате.
Колір м’якуша: білий.
Колір м’якуша: сіруватий. - Щільність м’якуша
- у молодих плодових тіл: Щільність м’якуша: щільний.
у старих плодових тіл: Щільність м’якуша: м’який (м’якуш шапинки). - Колір м’якуша після пошкодження
- Колір м’якуша після пошкодження: без зміни кольору.
Колір м’якуша після пошкодження: без зміни кольору.
Колір м’якуша після пошкодження: рожевуватий.
Колір м’якуша після пошкодження: червонуватий.
Де і коли росте
- Оселище
- Оселище: парк.
Оселище: сад. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці.
Характер росту плодових тіл: невеликими групами.
Характер росту плодових тіл: групами. - Частота трапляння
- Частота трапляння: звичайний.
- Період плодоношення
- Плодові тіла з’являються з червня до листопада.
- Територія поширення
Їстівність і кулінарія
- Їстівність
- Їстівний
Право
- Охорона
- У Польщі Leccinum scabrum не підлягає суворій або частковій видовій охороні.
- Торгівля
- Leccinum scabrum (усі різновиди) внесено до польського переліку грибів, допущених до обігу та виробництва грибних продуктів, позиція 15.
З чим можна сплутати
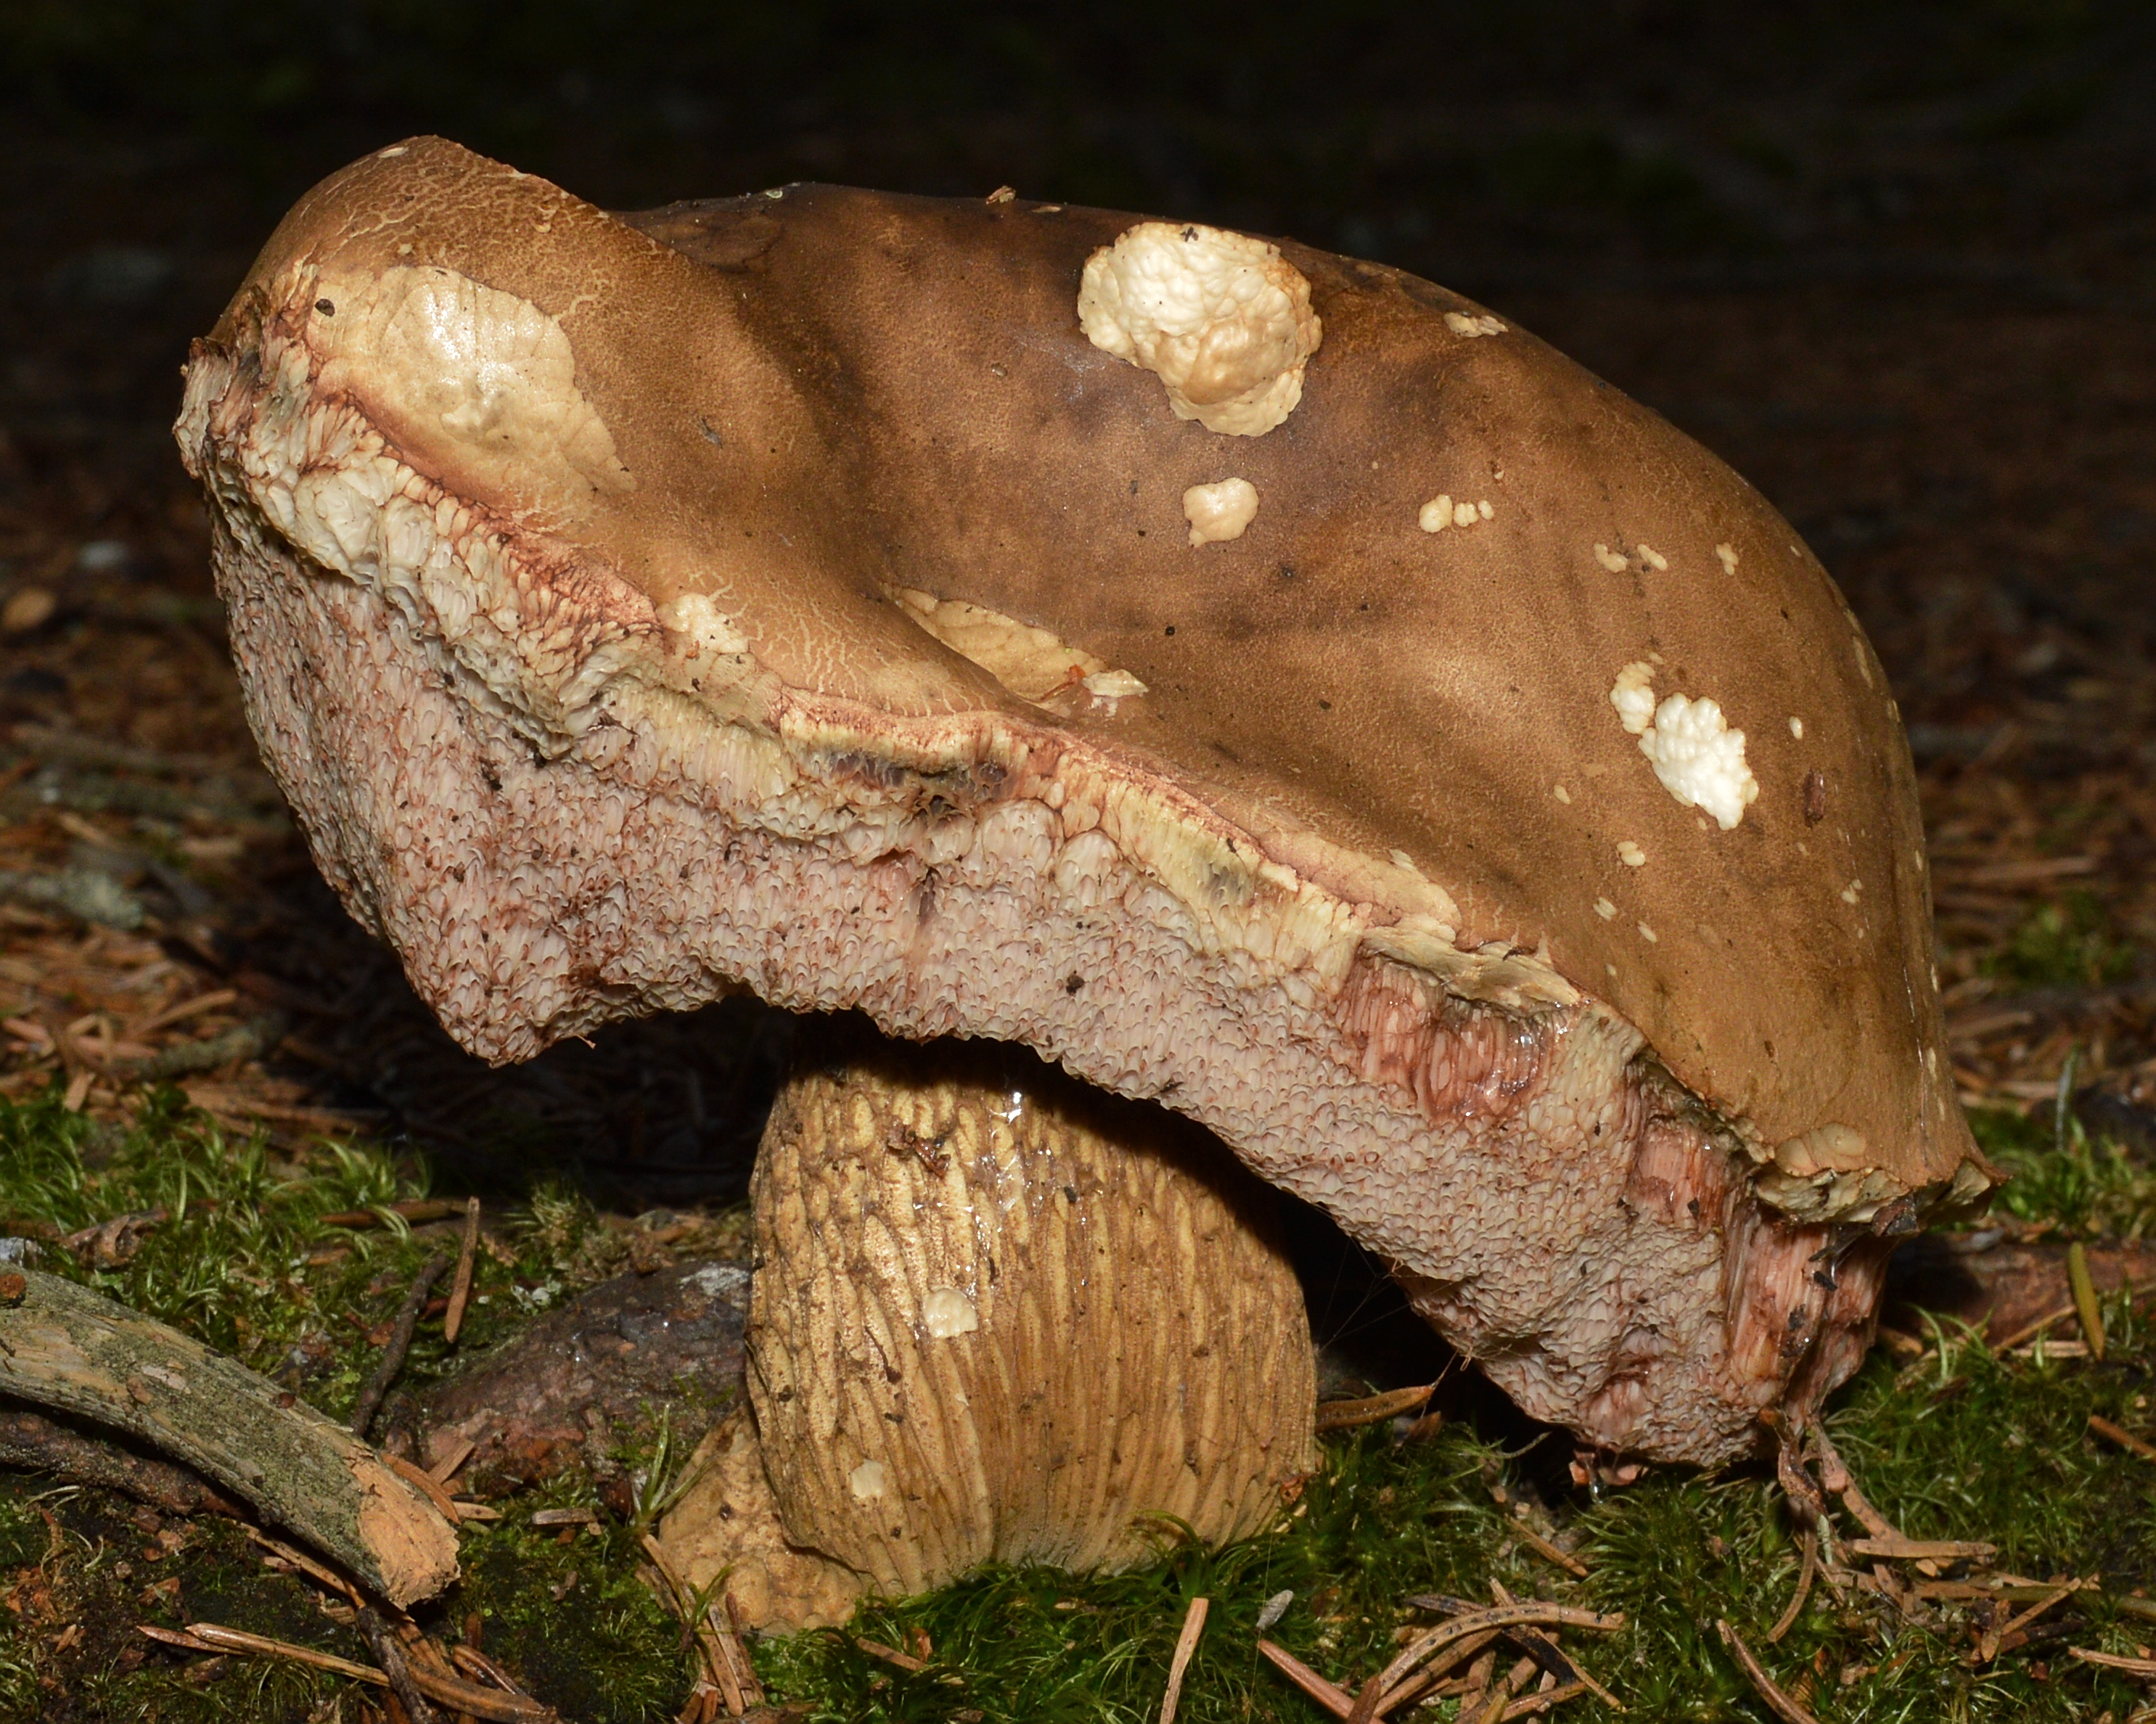
Tylopilus felleus
Основні відмінності
Підберезовик звичайний (Leccinum scabrum) може нагадувати старіші, великі плодові тіла гірчака. Він відрізняється білими трубочками без рожевого відтінку та ніжкою, вкритою темними лусочками, без жовтуватого фону і без сітки.
Leccinum variicolor
Основні відмінності
Підберезовик різнобарвний (Leccinum variicolor) також росте під березами, зазвичай у більш вологих місцях. Відрізняється виразним синьо-зеленим забарвленням м'якуша біля основи ніжки, уповільненим почервонінням м'якуша та часто плямистою, від темно-сірої до коричневої шапинкою.
Leccinum cyaneobasileucum
Основні відмінності
Підберезовик білоніжковий (Leccinum cyaneobasileucum) вирізняється синьо-зеленим забарвленням основи ніжки, зазвичай світлішою шапинкою та блідими або білими лусочками на ніжці.
Leccinum melaneum
Основні відмінності
Підберезовик чорно-бурий (Leccinum melaneum) характеризується дуже темною або майже чорною шапинкою, більш кремезною і масивною формою та щільнішим м'якушем. Статус цього таксона залишається дискусійним (іноді розглядається як різновид або окремий вид).
Leccinum duriusculum
Основні відмінності
Підберезовик твердуватий (Leccinum duriusculum) росте під тополями (насамперед під осикою). Його м'якуш після пошкодження червоніє, а потім сіріє або чорніє, а біля основи ніжки з'являється зеленувате забарвлення.
Leccinum pseudoscabrum
Основні відмінності
Підберезовик грабовий (Leccinum pseudoscabrum) відрізняється мікоризним зв'язком із грабом та потемнінням пошкодженого м'якуша.
Leccinum versipelle
Основні відмінності
Підосичник жовто-бурий (Leccinum versipelle) у коричневій колірній формі іноді плутають із підберезовиком звичайним, проте його м'якуш на зрізі виразно сіріє і темніє.
FAQ
Які ознаки вирізняють ніжку підберезовика звичайного?
Ніжка струнка, циліндрична, білувата і густо вкрита дрібними лусочками забарвленням від сірого через коричневе до чорнуватого. У міру росту плодового тіла вона стає волокнистою та здерев'янілою.
Чи є підберезовик звичайний їстівним грибом?
Так, це широко поширений у збиранні та смачний їстівний гриб. Особливо цінуються молоді шапинки. Ніжки старіших екземплярів бувають твердими та волокнистими, тому їх часто відкидають.
Чи можна сплутати підберезовик звичайний з отруйним грибом?
У Польщі немає смертельно отруйних трубчастих грибів такого вигляду. Недосвідчені грибники можуть сплутати його з гірчаком жовчним, який має гіркий смак і пори, що з віком рожевіють.
У яких місяцях зустрічається підберезовик звичайний?
Плодові тіла з'являються зазвичай від літа до пізньої осені, найчастіше з червня або липня до кінця жовтня, з піком плодоношення у вересні після теплих і вологих днів.
Чим відрізняється підберезовик звичайний від підосичника червоного?
Підосичник червоний має помаранчеву шапинку, м'якуш, що темніє до сіро-чорного, і синюватий біля основи ніжки. У підберезовика звичайного шапинка сіро-коричнева, а м'якуш може слабко рожевіти, коричневіти або сіріти.
Під якими деревами росте підберезовик звичайний?
Цей гриб утворює мікоризу виключно з березами. Його можна зустріти в березових, мішаних лісах, на узліссях гаїв і на торфовищах усюди, де ростуть берези.
Які частини плодового тіла найкраще підходять для переробки?
Найбільше цінуються шапинки молодих плодових тіл зі щільною структурою. Ніжки старіших грибів стають задерев'янілими, тому їх зазвичай сушать і мелють на приправу або просто викидають.
Чи змінює м'якуш підберезовика звичайного колір після розрізання?
М'якуш типового підберезовика білий або кремовий і практично не змінює кольору після пошкодження та не синіє, на відміну від деяких інших підберезовиків (наприклад, підберезовика різнобарвного).
Любитель
Низ шапинки
- Довжина трубочок
- Довжина трубочок: 8–19 mm.
Назви та історія
- Obowiązująca nazwa krajowa
- koźlarz babka
- Obowiązująca nazwa taksonomiczna
- Leccinum scabrum
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: коричневий.
- Відтінок спорового відбитка
- Відтінок спорового відбитка: оливково-коричневий. Відтінок спорового відбитка: Оливково-бурувата.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: веретеноподібний. Форма спори: веретеноподібний. Форма спори: видовжено-еліпсоїдний. Форма спори: майже веретеноподібний.
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 13–22 µm, ширина 4–6,5 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
- Гранулометричний склад ґрунту
- Гранулометричний склад ґрунту: піщаний.
- Вологість ґрунту
- Вологість ґрунту: сухий.
Вологість ґрунту: Вологий. - Мікоризні партнери
- Загальний зв’язок виду: Мікоризні партнери: Betula (загальний перелік партнерів).
Історія та культура
Вид був науково описаний Жаном-Батістом Бюльяром як Boletus scaber, а в 1821 році Семюел Фредерік Грей переніс його до роду Leccinum, створивши чинну комбінацію Leccinum scabrum. У польській народній традиції та регіональному слововжитку цей гриб отримав низку народних назв, таких як бабка, козляк, березюк чи підберезник, які безпосередньо вказують на його симбіоз із березою.
В етномікологічних дослідженнях підкреслюється стійка позиція підберезовиків у культурі збиральництва Центральної та Східної Європи. Однак ці записи залишаються описом ширшої групи: у свідомості грибників підберезовики функціонують як збірний народний таксон (Leccinum spp.), у межах якого не розрізняють окремі біологічні види з коричневими шапинками. Отже, будь-які традиційні вірування, давні звичаї збирання та назви на практиці стосуються всієї групи підберезовиків, пов'язаних із березами, а не виключно вузько окресленого Leccinum scabrum у розумінні сучасної таксономії.
Їстівність і безпека
Підберезовик звичайний (Leccinum scabrum) є загальновизнаним їстівним грибом із м'яким смаком і ніжним лісовим ароматом. Для споживання збирають насамперед молоді, щільні та пружні плодові тіла. Зрілі й старі екземпляри швидко в'януть, стають губчастими та схильними до насичення водою, а м'якуш у їхніх ніжках дерев'яніє і стає твердим та волокнистим, через що вони втрачають кулінарну цінність.
Цей вид безумовно потребує термічної обробки перед споживанням і не може вживатися сирим. До основних способів приготування належать варіння, тушкування або смаження. Під час варіння та теплової обробки м'якуш підберезовика звичайного природно темніє, набуваючи забарвлення від сіруватого до темно-коричневого, що є типовою ознакою цього гриба. У кулінарних цілях слід використовувати виключно здорові, свіжі й неушкоджені екземпляри, відкидаючи перестиглі плодові тіла, надмірно розм'яклі або такі, що мають сліди життєдіяльності комах.
Оселище та зростання
Підберезовик звичайний є мікоризним грибом, тісно пов'язаним із березами (Betula spp.), зокрема з березою повислою та пухнастою. Трапляється в листяних і мішаних лісах за участю цього дерева, у молодняках, чистих березових деревостанах, а також на торфовищах, вересовищах та вологих лісових галявинах. Віддає перевагу кислим, піщаним і піщано-глинистим субстратам.
Географічний ареал у певному трактуванні охоплює помірну й холодну зони Європи, де цей вид є звичайним. У мікологічній літературі вказувалося також на поширення в інших регіонах Північної півкулі, проте сучасні молекулярні дослідження вимагають обережності в узагальненнях щодо ареалу. У новіших публікаціях матеріал з Азії наводиться із застереженням як Leccinum cf. scabrum через таксономічні сумніви та необхідність ревізії визначень.
В умовах Центральної Європи, зокрема в Польщі, сезон плодоношення триває від раннього літа до пізньої осені. Згідно з національними фенологічними даними плодові тіла з'являються з червня по листопад (VI–XI), залежно від опадів і температури ґрунту.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний — źródło oznaczenia
Źródło bez opisu bibliograficznego · Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Źródło bez opisu bibliograficznego · Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Наукові назви та таксономія
- Чинна наукова назва
Leccinum scabrum
Leccinum scabrum (Bull.) Gray należy do rodziny Boletaceae w rzędzie Boletales (podklasa Agaricomycetidae, klasa Agaricomycetes, typ Basidiomycota, królestwo Fungi). Połączenie Graya zostało opublikowane w Natural Arrangement of British Plants 1:647 (1821). Bazionimem jest Boletus scaber Bull. z dzieła Herbier de la France 3, tablica 132. Rejestr Species Fungorum podaje datę 1783 [1782–83], natomiast rewizja taksonomiczna z 2005 r. wskazuje 1782 r.; rozbieżność ta pozostaje odnotowaną różnicą bibliograficzną.
Wśród historycznych ujęć i kombinacji taksonomicznych znajdują się m.in. Suillus scaber, Krombholzia scabra, Gyroporus scaber, Ceriomyces scaber, Tubiporus scaber, Krombholziella scabra oraz Trachypus scaber. W piśmiennictwie mykologicznym opisano również liczne odmiany i formy pod odrębnymi nazwiskami autorów i datami. Przynależność do dzisiejszej synonimii nie oznacza jednak tożsamego zakresu każdego dawnego ujęcia taksonomicznego.
Межі таксона та обмеження визначення
W literaturze odnotowano angielską nazwę zwyczajową Birch Bolete (bez przypisania do konkretnego obszaru anglojęzycznego). Niemiecka nazwa Gemeiner Birkenpilz nie ma bezpośredniego potwierdzenia w wykorzystanych źródłach.
Den Bakker i Noordeloos w rewizji z 2005 r. przyjęli szerokie ujęcie Leccinum scabrum, włączając do niego taksony opisywane pod nazwami roseofractum, avellaneum, rigidipes oraz subcinnamomeum. W tym ujęciu różowienie lub czerwienienie miąższu mieści się w naturalnej zmienności gatunku. Leccinum melaneum został w tej pracy potraktowany jako odrębny takson, a hipoteza o jego mieszańcowym pochodzeniu pozostaje nierozstrzygnięta (czeska literatura ujmuje go jako odmianę lub osobny gatunek). Z kolei Leccinum rotundifoliae w rewizji z 2005 r. uznano za odrębny takson, podczas gdy Species Fungorum włącza tę nazwę do synonimii L. scabrum.
Takson Leccinum oxydabile jest obecnie włączany do synonimii Leccinum scabrum w bazie Species Fungorum, choć inne bazy danych i rejestry mykologiczne (takie jak Checklist, GBIF czy MycoBank) bywają przywoływane w literaturze w kontekście odmiennych przypisań taksonomicznych. Cech dawnych ujęć tego taksonu nie należy bezkrytycznie przenosić na współcześnie definiowany gatunek.
Brak sinienia miąższu nie jest cechą wystarczającą do bezwzględnego oznaczenia gatunku, gdyż nietypowe owocniki innych gatunków (np. Leccinum snellii czy L. schistophilum) mogą nie wykazywać typowej dla siebie reakcji barwnej. Oznaczenie wymaga uwzględnienia budowy mikroskopowej skórki, zarodników i kaulocystyd. Reakcje chemiczne miąższu (brak reakcji lub słabe czerwienienie z formaliną oraz próby z FeSO4) mają zmienny przebieg zależny od wieku i wilgotności owocnika, przez co nie stanowią jednoznacznych kryteriów kluczowych.
- Zakres ujęcia taksonomicznego
Leccinum scabrum (Bull.) Gray; each literature report retains its own explicitly stated source concept. Den Bakker and Noordeloos2005 pp.547–550 are the wider concept including L.roseofractum, L.avellaneum and L.rigidipes. Gargano material is SAF545. No assignment of neighbouring species descriptions or subsection Scabra general characters.
[9] [10]
Екологія та поширення
- Частота трапляння
- Польща: Частота трапляння: звичайний. [10]
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
Каулоцистиди
Гіменіальні цистиди
- Довжина гіменіальної цистиди
- Довжина гіменіальної цистиди: 30–50 µm. [4]
- Форма гіменіальної цистиди
- Форма гіменіальної цистиди: веретеноподібна до пляшкоподібної. [4]
Форма гіменіальної цистиди: циліндричний. [4]
Форма гіменіальної цистиди: булавоподібний. [4]
Форма гіменіальної цистиди: Пляшкоподібна. [4] - Ширина гіменіальної цистиди
- Ширина гіменіальної цистиди: 5,5–7,5 µm. [4]
Шкірка шапинки
- Ширина елементів шкірки шапинки
- Ширина елементів шкірки шапинки: 3,5–8 µm. [4]
Ширина елементів шкірки шапинки: 8–17 µm. [4]
Ширина елементів шкірки шапинки: 7,5–16 µm. [4] - Інкрустація гіф шкірки
- Інкрустація гіф шкірки: наявний. [4]
- Колір пігменту шкірки
- Колір пігменту шкірки: коричневий. [4]
- Будова шкірки шапинки
- Будова шкірки шапинки: кутис. [4]
- Форма кінцевої клітини шкірки шапинки
- Форма кінцевої клітини шкірки шапинки: конічний. [4]
Спори
- Вміст спори
- Вміст спори: з вакуолями. [8]
- Краплі всередині спори
- Краплі всередині спори: наявний. [8]
- Довжина спори
- Довжина спори: 13–20 µm. [10]
Довжина спори: 13,5–22 µm. [4]
Довжина спори: 13–21 µm. [8]
Довжина спори: 13–20 µm. [5] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 2,5–3,5. [4]
- Форма спори
- Форма спори: веретеноподібний. [4]
Форма спори: веретеноподібний. [10]
Форма спори: видовжено-еліпсоїдний. [8]
Форма спори: майже веретеноподібний. [8] - Заглиблення над рубчиком базидіоспори
- Заглиблення над рубчиком базидіоспори: наявний. [4]
- Товщина стінки спори
- Товщина стінки спори: тонкостінний. [8]
Матеріал і методи досліджень
Metody i zapisy źródłowe — Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki; Długość kaulocystyd; Szerokość kaulocystyd; Długość cystydy hymenialnej; Szerokość cystydy hymenialnej; Szerokość elementów skórki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [4]
Kształt kaulocystyd; Kształt cystydy hymenialnej; Inkrustacja strzępek skórki; Barwa pigmentu skórki; Organizacja skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.” [4]
Metody i zapisy źródłowe — Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.
Identyfikacja kropli: nierozstrzygnięta.
Zawartość zarodnika; Krople wewnątrz zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika — zapis źródłowy: „Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [8]
Metody i zapisy źródłowe — Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [10]
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.” [10]
Metody i zapisy źródłowe — Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [5]
Перевірка поширення — обсяг і обмеження
Materiał: Pierwotna kolekcja autora atlasu z Kotliny Kłodzkiej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[10]Обсяг опрацювання
Перед завершенням запис потребує доповнення або перевірки.
- Пошук регіонів поширення потребує розрахунку.
- Зв'язки попередніх висновків потребують повторної перевірки.
- Нові джерела вимагають обліку інформації, виявленої під час огляду.
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Підстава відомостей про охорону
Koźlarz babka nie jest objęty w Polsce gatunkową ochroną ścisłą ani częściową.
[6]Підстава відомостей про торгівлю
Koźlarz babka (wszystkie odmiany) figuruje w polskim wykazie grzybów dopuszczonych do obrotu i produkcji przetworów grzybowych, poz.15.
[7]Найважливіші речовини та їхня дія
Analizę biochemiczną wysuszonej i zmielonej próby SAF545 przeprowadziło laboratorium EcamRicert (raport 20LA09820 z 28 lipca 2020 r.) w trzech powtórzeniach technicznych, metodami analitycznymi według Baldini i in. (1996), z przelicznikiem białka N × 6,25 i oszacowaniem niepewności według UNI ISO 3534-1:2000.
Skład podstawowy i wartość energetyczna suchej zmielonej próby (wartości na 100 g):
- Sucha masa: 91,29 ± 0,38 g
- Wilgotność: 8,71 ± 0,38 g
- Białko ogólne (N × 6,25): 31,7 ± 1,3 g
- Tłuszcz ogólny: 3,64 ± 0,22 g
- Węglowodany: 31,57 ± 2,44 g
- Błonnik pokarmowy (wysokocząsteczkowy): 18,9 ± 2,0 g
- Popiół: 5,48 ± 0,30 g
- Wartość energetyczna: 324 ± 5 kcal (1361 ± 21 kJ).
Zawartość cukrów w suchej zmielonej próbie (g/100 g):
- Glukoza: 2,63 ± 0,41
- Fruktoza: 0,334 ± 0,053
- Laktoza: < 0,010
- Sacharoza: < 0,010
- Maltoza: < 0,010
- Cukry ogółem: 2,964 ± 0,413.
Zawartość witamin (%) i składników mineralnych (mg/kg) w suchej zmielonej próbie:
- Witamina D3: < 0,00002%
- Witamina B1: < 0,00001%
- Witamina B2: 0,0016 ± 0,0002%
- Witamina B3: 0,0146 ± 0,0015%
- Witamina B5: 0,0019 ± 0,0002%
- Witamina B6: < 0,00003%
- Witamina B8: < 0,00003%
- Witamina B12: < 0,000005%
- Sód (Na): 0,028 ± 0,006 mg/kg
- Potas (K): 2,25 ± 0,53 mg/kg
- Żelazo (Fe): < 0,003 mg/kg
- Wapń (Ca): < 0,025 mg/kg
- Fosfor (P): 3710,0 ± 670,0 mg/kg
- Magnez (Mg): 590,0 ± 130,0 mg/kg
- Cynk (Zn): 71,0 ± 13,0 mg/kg
- Miedź (Cu): 16,8 ± 3,2 mg/kg
- Selen (Se): 7,4 ± 1,8 mg/kg
- Mangan (Mn): 6,6 ± 1,3 mg/kg
- Nikiel (Ni): 1,01 ± 0,18 mg/kg
- Chrom (Cr): 0,84 ± 0,16 mg/kg
- Siarka całkowita (S): 8200,0 ± 1,50 mg/kg.
Profil kwasów tłuszczowych w suchej zmielonej próbie (g/100 g):
- Kwas masłowy (4:0): < 0,010
- Kwas kapronowy (6:0): < 0,010
- Kwas enantowy (7:0): < 0,010
- Kwas kaprylowy (8:0): < 0,010
- Kwas kaprynowy (10:0): < 0,010
- Kwas kaproleinowy (10:1): < 0,010
- Kwas laurynowy (12:0): < 0,010
- Kwas lauroleinowy (12:1 n-3): < 0,010
- Kwas izomirystynowy (14:0 iso): 0,0010
- Kwas mirystynowy (14:0): 0,0073 ± 0,0017
- 14:1 (suma): < 0,0010
- Kwas pentadekanowy (15:0): 0,0094 ± 0,0021
- 15:1 (suma): 0,0093 ± 0,0021
- Kwas sarcinowy (15:0 ante-iso): < 0,0010
- Kwas izopalmitynowy (16:0 iso): < 0,0010
- Kwas anteizopalmitynowy (16:0 ante-iso): < 0,0010
- Kwas palmitynowy (16:0): 0,372 ± 0,056
- 17:0 ante-iso: 0,0088 ± 0,0020
- Kwas margarynowy (17:0): 0,00366 ± 0,00100
- Kwas margarynowy (17:0 iso): < 0,0010
- 17:1 (suma): 0,0098 ± 0,0020
- Kwas palmitooleinowy (16:1 suma): 0,0224 ± 0,0048
- Kwas izostearynowy (18:0 iso): 0,0348 ± 0,0074
- Kwas anteizostearynowy (c-18:0 ante-iso): < 0,0010
- Kwas stearynowy (18:0): 0,075 ± 0,016
- Kwas oleinowy (18:1 suma): 1,05 ± 0,13
- 19:0: < 0,0010
- 19:0 ante-iso: < 0,0010
- 19:1 (suma): < 0,0010
- Kwas arachidowy (20:0): 0,0055 ± 0,0013
- Kwas izoarachidowy (20:0 iso): < 0,0010
- Kwas α-linolenowy (18:3 suma): 0,0085 ± 0,0017
- Kwas gadoleinowy (20:1 suma): 0,0145 ± 0,0031
- Sprzężony kwas linolowy (suma 18:2 CLA): < 0,0010
- Kwas heneikozanowy (21:0): < 0,0010
- Kwas stearydonowy (18:4 n-3): 0,0146 ± 0,0031
- Kwas behenowy (22:0): 0,0042 ± 0,0011
- 22:1: 0,00206 ± 0,00077
- Kwas lignocerynowy (24:0): 0,00231 ± 0,00080
- Wielonienasycone kwasy tłuszczowe >C20: 0,00183 ± 0,00074
- Kwasy tłuszczowe nasycone (SFA): 0,523 ± 0,059
- Kwasy tłuszczowe jednonienasycone (MUFA): 1,11 ± 0,12
- Kwasy tłuszczowe wielonienasycone (PUFA): 1,98 ± 0,23
- Stosunek kwasów PUFA/MUFA: 1,78 ± 0,29
- Stosunek kwasów PUFA/SFA: 3,79 ± 0,62.
Zawartość wolnych aminokwasów i związków pokrewnych w suchej zmielonej próbie (g/100 g):
- Kwas asparaginowy: 0,1124 ± 0,0082
- Kwas glutaminowy: 0,4318 ± 0,0313
- Alanina: 1,0600 ± 0,0769
- Arginina: 0,4556 ± 0,0331
- Asparagina: 0,1575 ± 0,0114
- Cystyna: < 0,0100
- Prolina: 0,1005 ± 0,0073
- Fenyloalanina: 0,0311 ± 0,0024
- Glicyna: 0,2679 ± 0,0194
- Glutamina: 0,9199 ± 0,0667
- Izoleucyna: 0,0222 ± 0,0017
- Histydyna: 0,1353 ± 0,0098
- Leucyna: 0,0300 ± 0,0023
- Lizyna: 0,2170 ± 0,0158
- Metionina: < 0,0100
- Ornityna: 0,2085 ± 0,0151
- Seryna: 0,3202 ± 0,0232
- Tyrozyna: 0,0538 ± 0,0040
- Treonina: 0,2762 ± 0,0200
- Walina: 0,1220 ± 0,0089
- Kwas γ-aminomasłowy (GABA): 0,3900 ± 0,0283
- Kwas α-aminomasłowy: < 0,0010
- Wolne aminokwasy ogółem: 5,31 ± 0,13.
W profilu lipidowym zmielonej próby wielonienasycone kwasy tłuszczowe (PUFA) stanowią 1,98 ± 0,23 g/100 g, jednonienasycone (MUFA) 1,11 ± 0,12 g/100 g, a nasycone (SFA) 0,523 ± 0,059 g/100 g, przy proporcjach PUFA/MUFA wynoszącej 1,78 ± 0,29 oraz PUFA/SFA równej 3,79 ± 0,62. Pula wolnych aminokwasów wynosi 5,31 ± 0,13 g/100 g, z istotnym udziałem alaniny, glutaminy oraz kwasu γ-aminomasłowego (GABA, 0,3900 ± 0,0283 g/100 g).
Dane analityczne badanej próby wykazują następujące poziomy wybranych mikroskładników: witamina D3 poniżej 0,00002%, żelazo poniżej 0,003 mg/kg, wapń poniżej 0,025 mg/kg, sód 0,028 ± 0,006 mg/kg, a potas 2,25 ± 0,53 mg/kg suchej masy, przy wyższych poziomach fosforu (3710,0 ± 670,0 mg/kg) i siarki całkowitej (8200,0 ± 1,50 mg/kg).
Średnice stref zahamowania wzrostu w próbie krążkowej wyniosły:
- Listeria monocytogenes ATCC 19114: MAE: 13,5 ± 0,2 mm; UAE: 12,0 ± 0,1 mm (różnica istotna statystycznie, P < 0,01)
- Staphylococcus aureus subsp. aureus ATCC 33862: MAE: 12,5 ± 0,1 mm; UAE: 12,5 ± 0,1 mm
- Salmonella enterica subsp. enterica ATCC 13076: MAE: 11,5 ± 0,2 mm; UAE: 11,0 ± 0,1 mm
- Escherichia coli ATCC 25922: MAE: 10,5 ± 0,2 mm; UAE: 10,0 ± 0,2 mm.
Stopień zahamowania wzrostu bakterii w teście mikrorozcieńczeń (kategorie autorów: brak: −; niskie ≤35%: +; umiarkowane >35–70%: ++; wysokie >70%: +++):
100 mg/mL
- L. monocytogenes: MAE 99,80% (+++); UAE 94,90% (+++)
- S. aureus: MAE 99,75% (+++); UAE 95,38% (+++)
- S. enterica: MAE 99,76% (+++); UAE 99,79% (+++)
- E. coli: MAE 99,83% (+++); UAE 97,97% (+++)
50 mg/mL
- L. monocytogenes: MAE 92,92% (+++); UAE 79,58% (+++)
- S. aureus: MAE 61,93% (++); UAE 66,43% (++)
- S. enterica: MAE 81,77% (+++); UAE 89,94% (+++)
- E. coli: MAE 93,40% (+++); UAE 80,07% (+++)
25 mg/mL
- L. monocytogenes: MAE 74,11% (+++); UAE 57,60% (++)
- S. aureus: MAE 40,82% (++); UAE 46,76% (++)
- S. enterica: MAE 46,65% (++); UAE 67,62% (++)
- E. coli: MAE 75,51% (+++); UAE 66,67% (++)
12,5 mg/mL
- L. monocytogenes: MAE 39,15% (++); UAE 31,08% (+)
- S. aureus: MAE 25,04% (+); UAE 20,75% (+)
- S. enterica: MAE 55,39% (++); UAE 43,44% (++)
- E. coli: MAE 51,32% (++); UAE 51,94% (++)
6,25 mg/mL
- L. monocytogenes: MAE 30,12% (+); UAE 18,33% (+)
- S. aureus: MAE 24,32% (+); UAE 22,30% (+)
- S. enterica: MAE 43,22% (++); UAE 42,82% (++)
- E. coli: MAE 46,73% (++); UAE 39,26% (++)
3,125 mg/mL
- L. monocytogenes: MAE 23,97% (+); UAE 15,58% (+)
- S. aureus: MAE 19,03% (+); UAE 16,33% (+)
- S. enterica: MAE 37,26% (++); UAE 28,90% (+)
- E. coli: MAE 27,61% (+); UAE 19,13% (+)
1,5625 mg/mL
- L. monocytogenes: MAE 17,50% (+); UAE 12,13% (+)
- S. aureus: MAE 6,38% (+); UAE 10,63% (+)
- S. enterica: MAE 18,68% (+); UAE 20,70% (+)
- E. coli: MAE 23,18% (+); UAE 20,84% (+)
0,78125 mg/mL
- L. monocytogenes: MAE 14,19% (+); UAE 11,59% (+)
- S. aureus: MAE 4,13% (+); UAE 10,84% (+)
- S. enterica: MAE 5,07% (+); UAE 7,10% (+)
- E. coli: MAE 0,00% (−); UAE 10,52% (+).
W teście mikrorozcieńczeń oba ekstrakty w stężeniu 100 mg/mL silnie hamowały wzrost wszystkich czterech badanych szczepów (>70%). Przy stężeniu 50 mg/mL ekstrakt UAE hamował wzrost E. coli na wysokim poziomie 80,07%. Przy stężeniu 6,25 mg/mL ekstrakt UAE hamował wzrost S. enterica na poziomie umiarkowanym (42,82%). Przy najniższym testowanym stężeniu 0,78125 mg/mL ekstrakt MAE nie wykazywał hamowania wzrostu E. coli (0,00%), podczas gdy pozostałe warianty wykazywały niskie wartości hamowania.
Badania aktywności biologicznej ekstraktów wodnych opublikowano w czasopiśmie Mycology (online 2024, wydanie drukowane 16(1), 2025, s. 402–412; erratum z 2025 r. pod DOI 10.1080/21501203.2025.2461915). Przedstawione wyniki mają charakter wyłącznie laboratoryjnych testów in vitro.
Оселище та зростання
Оселище, регіон і сезон
Koźlarz babka tworzy ektomikoryzę wyłącznie z brzozami (Betula). Wyrasta na ziemi, pojedynczo, w małych grupach lub gromadnie, w lasach, zaroślach, a także poza lasem – w parkach, ogrodach i na trawnikach pod brzozami. Preferuje gleby piaszczyste, suche do umiarkowanie wilgotnych, o odczynie słabo kwaśnym, pojawiając się m.in. w ubogich murawach z kostrzewą czerwoną (Festuca rubra) i śmiałkiem pogniecionym (Deschampsia flexuosa).
W Czechach koźlarz babka jest bardzo pospolity i występuje od nizin po tereny górskie w okresie od czerwca do listopada (udokumentowane znaleziska pochodzą m.in. z kraju środkowoczeskiego – 6 X 2024, pilzneńskiego – 18 VIII 2023, zlińskiego – 28 IX 2018 i Wysoczyzny – 14 IX 2017).
Gatunek jest szeroko rozprzestrzeniony w Europie (bardzo pospolity m.in. w Holandii) i wykazuje prawdopodobny zasięg okołobiegunowy; materiały zielnikowe pochodzą m.in. z Holandii, Finlandii oraz prowincji Ontario w Kanadzie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Джерела |
|---|---|---|---|
| Польща | Клодзька улоговина | VI–XI |
|
Матеріали
Гербарні колекції
- 44
Нідерланди; Drenthe, Emmen; 1999-10-02; H.C. den Bakker
[2]- 50
Нідерланди; Drenthe, Nieuw Amsterdam; 1999-10-04; H.C. den Bakker
[2]- 54
Нідерланди; Drenthe, Borger, vicinity of cottage park Land van Bartje; 1999-10-05; H.C. den Bakker
[2]- 01-009
Нідерланди; Drenthe, Gieten, Boekweitveentje; 2001; R. Enzlin
[2]- 48
Нідерланди; Drenthe, Hoogeveen; leg.B.de Vries; 1999-10-03; H.C. den Bakker
[2]- 62
Нідерланди; Noord-Holland, Amsterdamse Waterleiding Duinen, Eiland van Rolvers; 1999-10-23; H.C. den Bakker
[2]- 58
Нідерланди; Zuid-Holland, Wassenaar, Meijendel; 1999-10-17; H.C. den Bakker
[2]- 42
Нідерланди; Zuid-Holland, Voorschoten; C.Bas; 1999-09-30; H.C. den Bakker
[2]- 124
Нідерланди; Utrecht, Zeist, Soesterberg; 2000-10-06; H.C. den Bakker
[2]- 1+2 (L), designated epitype
Франція; Guyancourt, along N12, vicinity of Versailles; 2001-09-27; J. van Brummelen
[2]- Збір
Франція; Orne, Foret de Belleme; 2001-09-28; Van Brummelen
[2]- 95
Норвегія; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 91
Норвегія; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 87
Норвегія; Sogn og Fjordane, Sogndalsfjøra; IX 2000; H.C. den Bakker
[2]- 239
Велика Британія; Scotland, Inverness-shire, Aberarder Forest; 2001-09-13; H.C. den Bakker
[2]- 231
Велика Британія; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 237
Велика Британія; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 4399 (E), holotype L.rigidipes
Велика Британія; Scotland, Inverness-shire, Abernethy Forest; 1972-08-31; P. Orton
[2]- 4944 (E), holotype L.roseofractum
Велика Британія; Scotland, Ross & Cromarty, Loch Maree; R. Watling
[2]- 22
Швеція; Jämtland, Borgsjö; 1999-08-24; H.C. den Bakker
[2]- 80
Швеція; Åre; 2000-09-04; H.C. den Bakker
[2]- 2003076
Велика Британія; Wales, South Glamorgan, Merthyr-mawr sand dunes; A. Hills
[2]- SAF545
Польща; Białowieża forest, Podlaskie; literal published location, not geocoded; summer; exact date/year unreported
[2]
Джерела
- leccinum_scabrum.source-collections
- src-bakker 2005
- src-cms-scabrum
- src-eli-protection-2014
- src-eli-trade-2026
- src-gargano 2024
- src-gbif-leccinum_scabrum
- src-snowarski-scabrum