
Jedlý

Nastavte polohu, abyste viděli údaje pro svůj region.
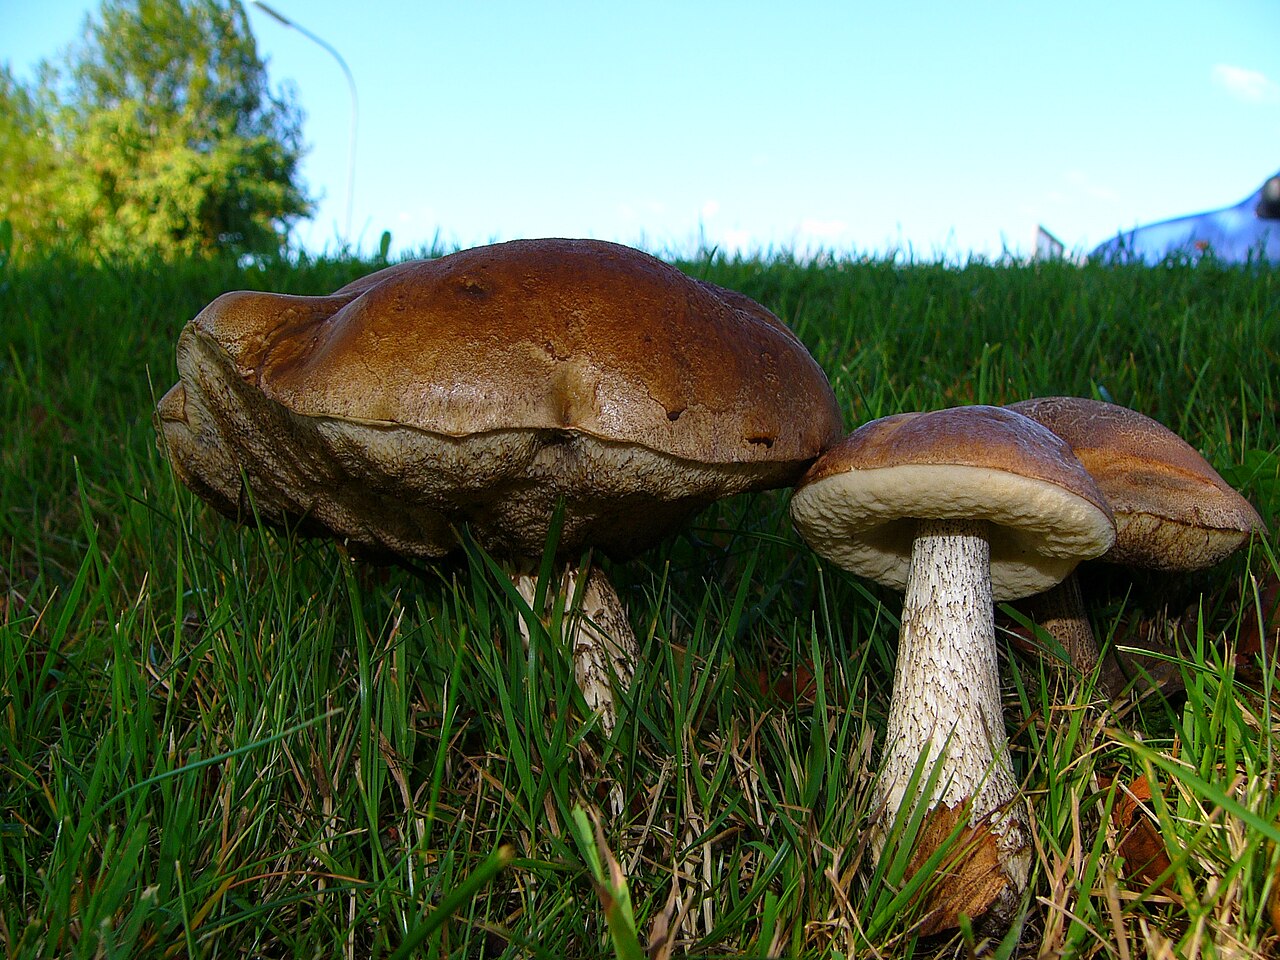
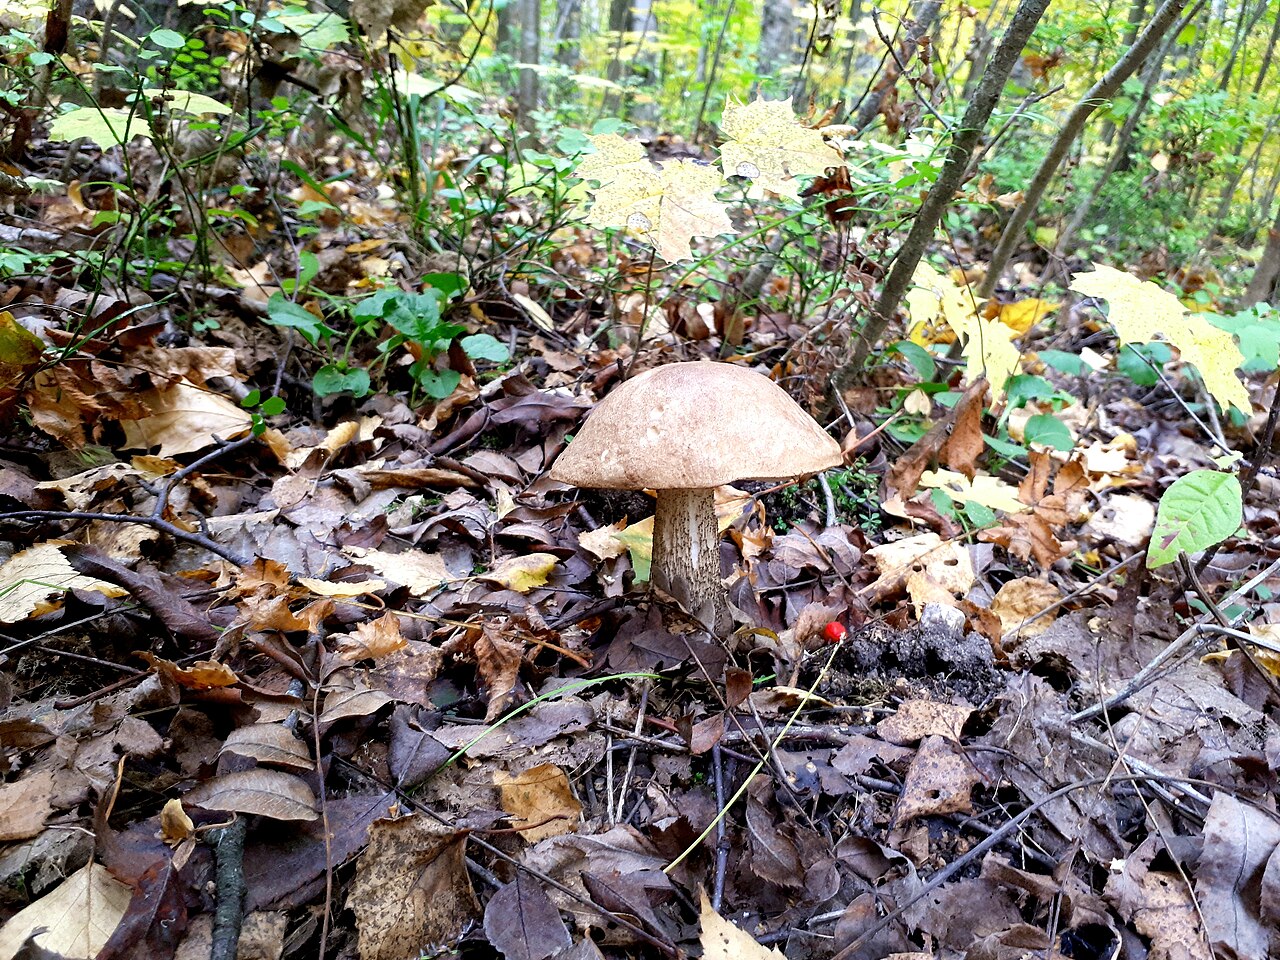
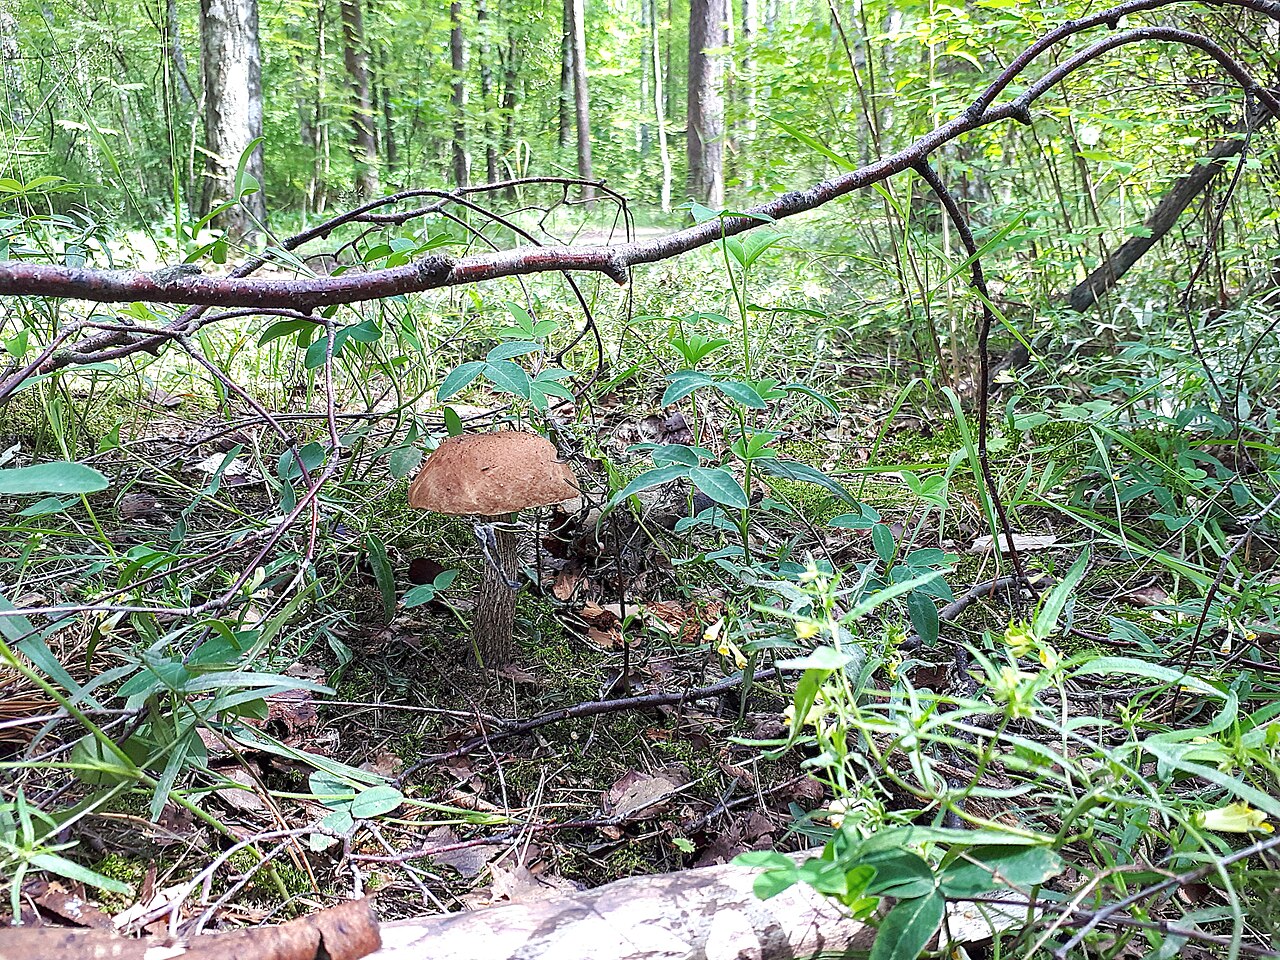
Kozák březový (Leccinum scabrum) je v Polsku běžná jedlá houba tvořící mykorhizu s břízami. Vyskytuje se v listnatých a smíšených lesích od léta do podzimu. Klobouk má poduškovitý, v odstínech šedé, hnědé nebo okrové barvy, se suchým a hladkým povrchem. Hymenofor tvoří drobné rourky s bělavými, s věkem šednoucími póry. Třeň je štíhlý, světlý, pokrytý tmavými šupinkami. Dužnina je bělavá a po rozkrojení v zásadě nemění barvu. Ceněn je pro svou jemnou houbovou chuť.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: vyklenutý.
u starých plodnic: Tvar klobouku: plochý.
Tvar klobouku: vyklenutý. - Pokryv klobouku
- Pokryv klobouku: sametový.
u mladých plodnic: Pokryv klobouku: plstnatý.
u zralých plodnic: Pokryv klobouku: holá.
u zralých plodnic: Pokryv klobouku: šupinatá. - Lepkavost a slizkost klobouku
- za mokra: Lepkavost a slizkost klobouku: lepkavý.
za mokra: Lepkavost a slizkost klobouku: slizký. - Barva klobouku
- Barva klobouku: tmavohnědý.
Barva klobouku: žlutohnědý.
Barva klobouku: hnědý.
Barva klobouku: okrově hnědý.
Barva klobouku: černohnědý.
Barva klobouku: šedohnědý.
Barva klobouku: oříškově hnědý.
Barva klobouku: červenohnědý. - Postavení okraje
- Postavení okraje: zahnutý dolů.
Postavení okraje: zahnutý dovnitř. - Přesah okraje klobouku přes hymenofor
- Přesah okraje klobouku přes hymenofor: nepřesahuje hymenofor.
Přesah okraje klobouku přes hymenofor: přesahující hymenofor. - Průměr klobouku
- Průměr klobouku je 30–200 mm.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: rourky.
Rourky u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: přirostlý k třeni (rourky).
- Šířka přirostnutí hymenoforu
- Šířka přirostnutí hymenoforu: široce přirostlý (rourky).
- Barva pórů po poranění
- Barva pórů po poranění: nahnědlý.
- Přirozená barva pórů
- u zralých plodnic: Přirozená barva pórů: šedohnědý.
u mladých plodnic: Přirozená barva pórů: bílý. - Přirozená barva rourek
- u zralých plodnic: Přirozená barva rourek: šedohnědý.
u mladých plodnic: Přirozená barva rourek: bělavá.
Třeň a báze
- Tvar třeně
- Tvar třeně: válcovitý.
Tvar třeně: kyjovitý. - Báze třeně
- Báze třeně: kyjovitý.
- Barva třeně
- Barva třeně: bělavá.
Barva třeně: žlutavý.
Barva třeně: světle hnědý. - Reliéf povrchu třeně
- Reliéf povrchu třeně: brázditý.
- Pokryv povrchu třeně
- Pokryv povrchu třeně: šupinatá.
- Barva ornamentace třeně
- Barva ornamentace třeně: načernalý.
Barva ornamentace třeně: šedavý.
Barva ornamentace třeně: bledě hnědý.
Barva ornamentace třeně: černý.
Barva ornamentace třeně: šedohnědý. - Vnitřek třeně
- Vnitřek třeně: plný.
- Konzistence třeně
- Konzistence třeně: tvrdý.
Konzistence třeně: vláknitý. - Délka třeně
- Délka třeně: 50–200 mm.
- Průměr třeně
- Průměr třeně: 10–55 mm.
Dužnina
- Barva dužniny
- Barva dužniny: bělavá.
Barva dužniny: bílý.
Barva dužniny: šedavý. - Pevnost dužniny
- u mladých plodnic: Pevnost dužniny: pevný.
u starých plodnic: Pevnost dužniny: měkký (dužnina klobouku). - Barva dužniny po poranění
- Barva dužniny po poranění: beze změny barvy.
Barva dužniny po poranění: beze změny barvy.
Barva dužniny po poranění: narůžovělý.
Barva dužniny po poranění: načervenalý.
Kde a kdy roste
- Stanoviště
- Stanoviště: park.
Stanoviště: zahrada. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: v malých skupinách.
Způsob růstu plodnic: ve skupinách. - Četnost výskytu
- Četnost výskytu: hojný.
- Doba růstu
- Plodnice se objevují od června do listopadu.
- Oblast výskytu
Jedlost a kuchyně
- Jedlost
- Jedlý
Právo
- Ochrana
- Leccinum scabrum v Polsku nepodléhá přísné ani částečné druhové ochraně.
- Prodej
- Leccinum scabrum (všechny variety) je pod položkou 15 v polském seznamu hub povolených k prodeji a výrobě houbových výrobků.
Možná záměna
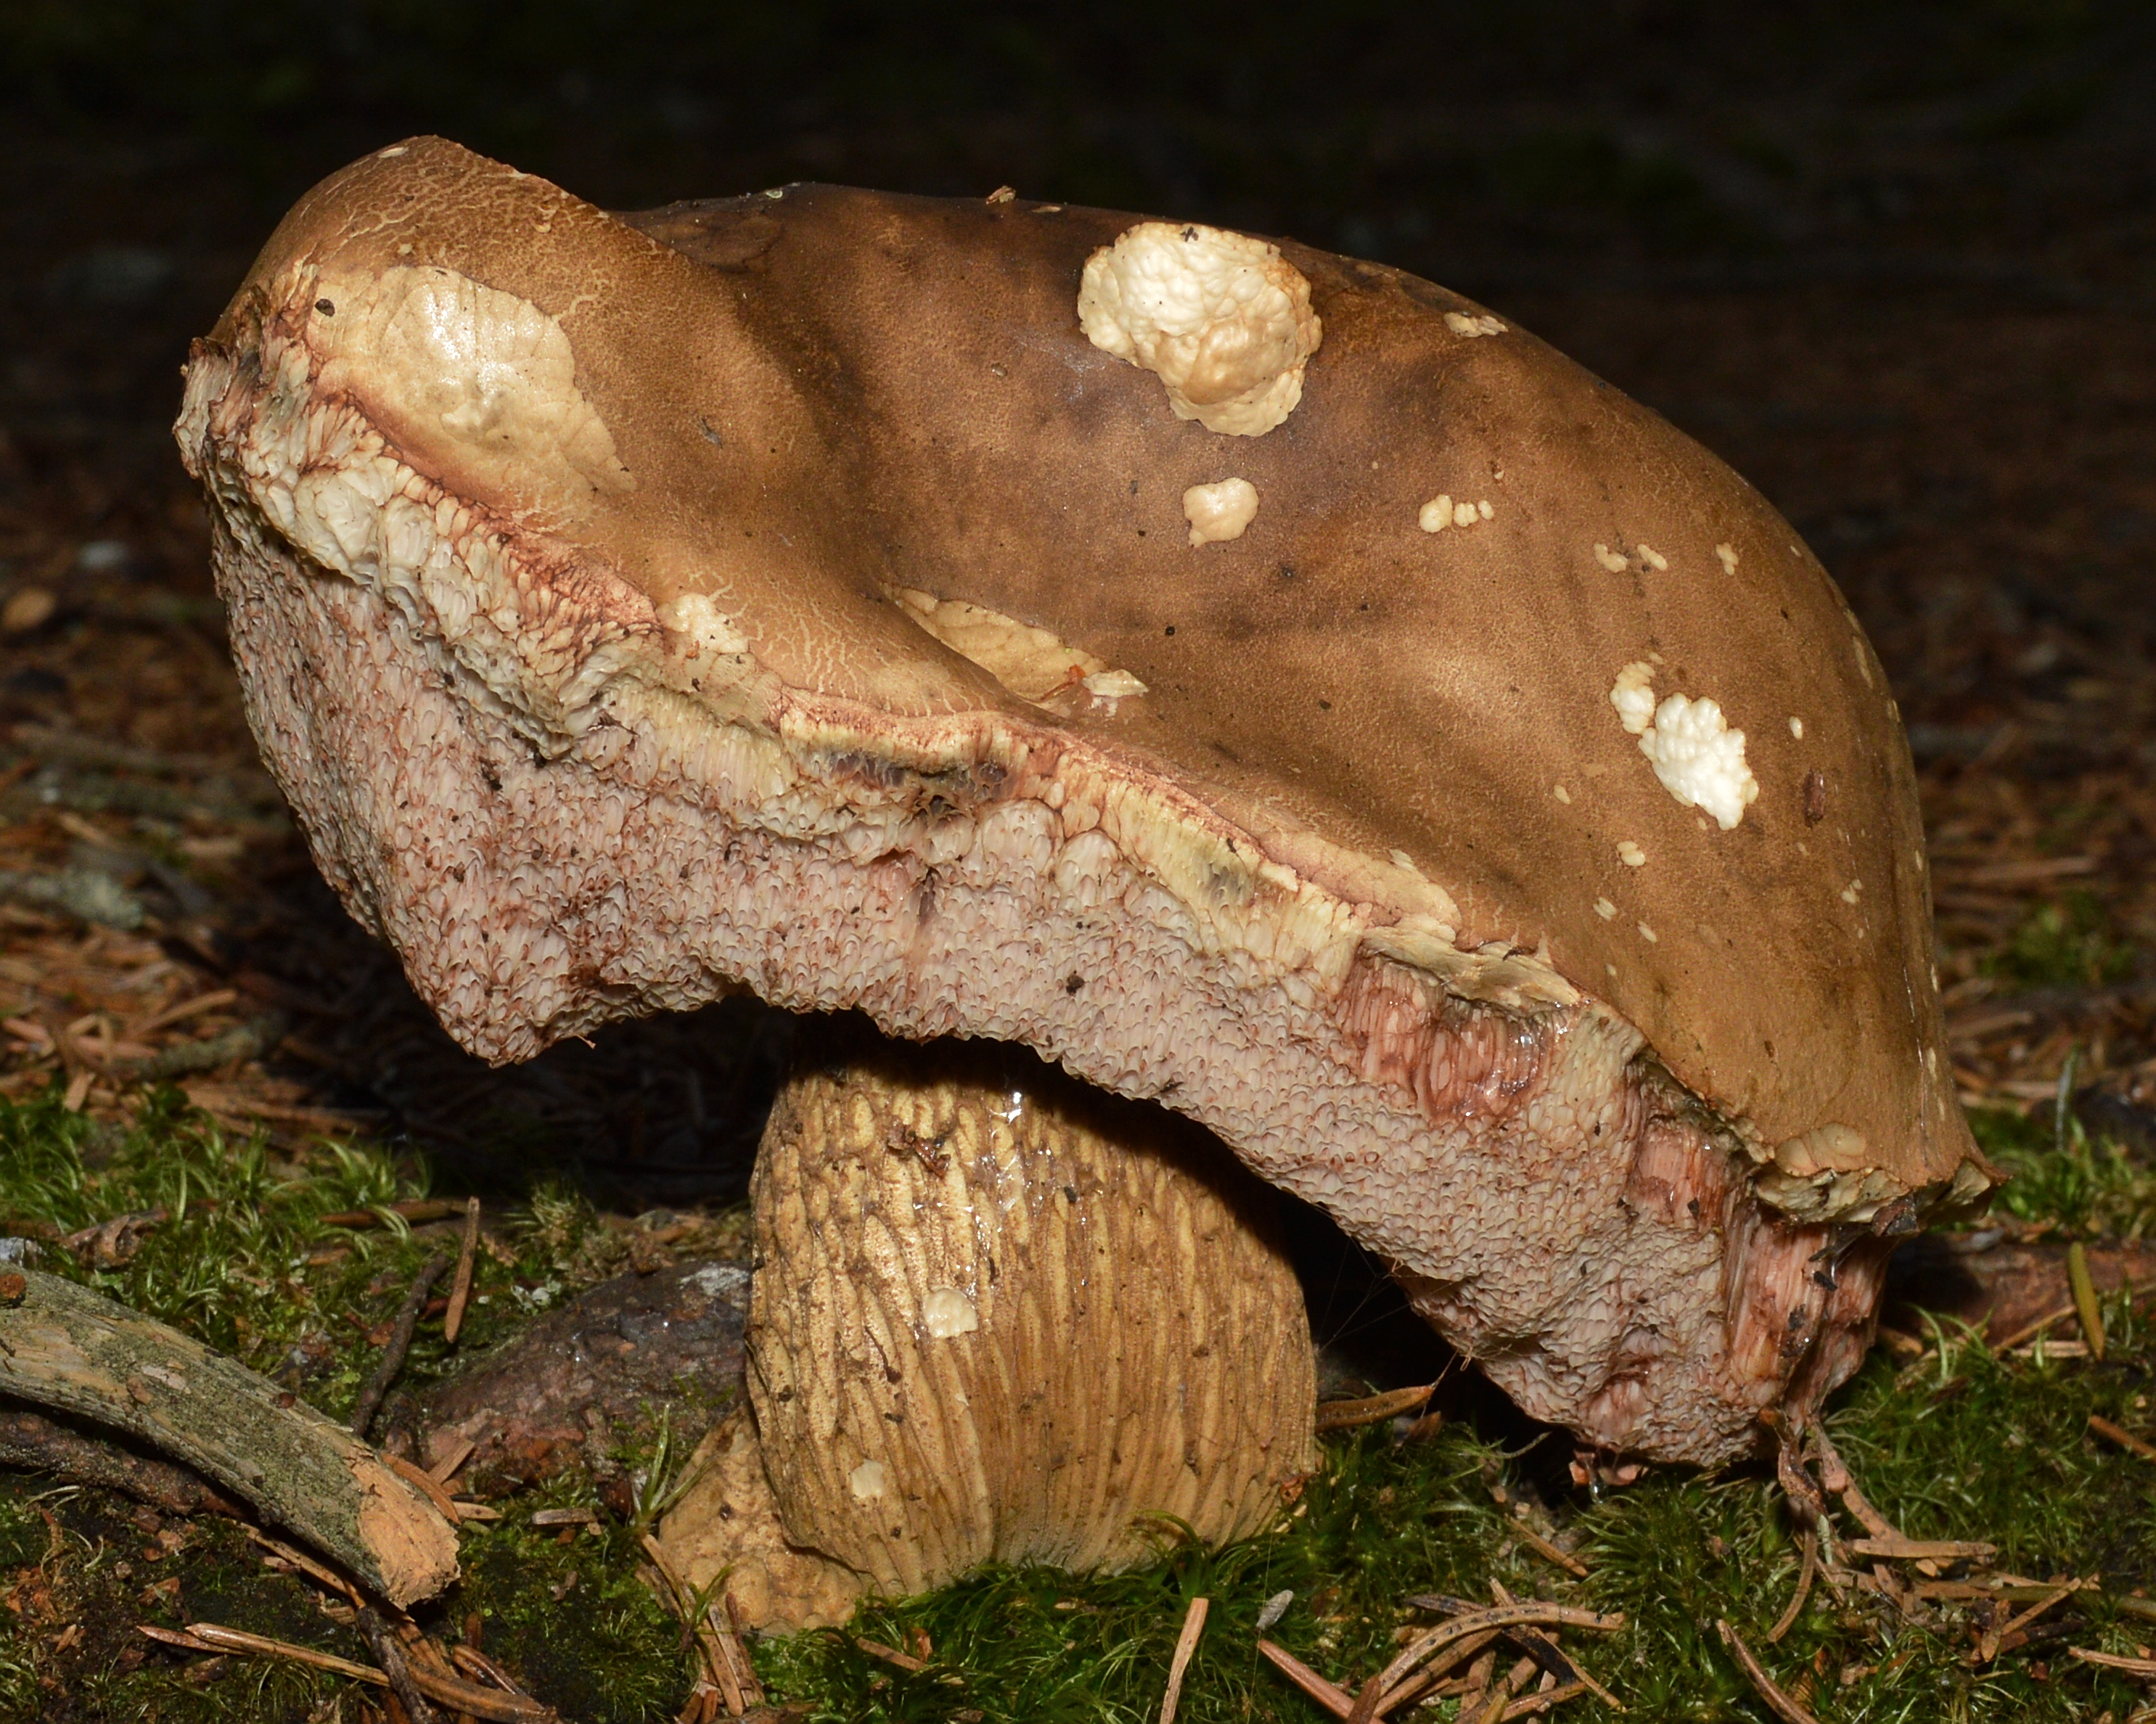
Tylopilus felleus
Hlavní rozdíly
Kozák březový (Leccinum scabrum) může připomínat starší, vzrostlé plodnice hřibu žlučového. Liší se bílými rourkami bez růžového odstínu a třeněm pokrytým tmavými šupinkami, bez nažloutlého podkladu a bez síťky.
Leccinum variicolor
Hlavní rozdíly
Kozák barvoměnný (Leccinum variicolor) roste rovněž pod břízami, obvykle na vlhčích stanovištích. Liší se výrazným modrozeleným zbarvením dužniny na bázi třeně, opožděným červenáním dužniny a často skvrnitým, tmavě šedým až hnědým kloboukem.
Leccinum cyaneobasileucum
Hlavní rozdíly
Kozák březobarvý (Leccinum cyaneobasileucum) se vyznačuje modrozeleným zbarvením báze třeně, zpravidla světlejším kloboukem a bledými nebo bílými šupinkami na třeni.
Leccinum melaneum
Hlavní rozdíly
Kozák černohnědý (Leccinum melaneum) se vyznačuje velmi tmavým až téměř černým kloboukem, podsaditějším a masivnějším vzrůstem a pevnější dužninou. Status tohoto taxonu zůstává předmětem diskusí (bývá pojímán jako varieta nebo samostatný druh).
Leccinum duriusculum
Hlavní rozdíly
Kozák topolový (Leccinum duriusculum) roste pod topoly (především pod osikou). Jeho dužnina po poškození červená, poté šedne nebo černá a na bázi třeně se objevuje zelenkavé zbarvení.
Leccinum pseudoscabrum
Hlavní rozdíly
Kozák habrový (Leccinum pseudoscabrum) se liší mykorhizní vazbou na habr a tmavnutím poraněné dužniny.
Leccinum versipelle
Hlavní rozdíly
Křemenáč březový (Leccinum versipelle) v hnědé barevné formě bývá zaměňován s kozákem březovým, avšak jeho dužnina na řezu zřetelně šedne a tmavne.
FAQ
Jaké znaky vyznačují třeň kozáka březového?
Třeň je štíhlý, válcovitý, bělavý a hustě pokrytý drobnými šupinkami v barvě od šedé přes hnědou až po načernalou. Jak plodnice roste, stává se vláknitým a dřevnatým.
Je kozák březový jedlá houba?
Ano, je to běžně sbíraná a chutná jedlá houba. Ceněné jsou zejména mladé klobouky. Třeně starších kusů bývají tvrdé a vláknité, proto se často vyřazují.
Lze kozák březový zaměnit s jedovatou houbou?
V Polsku nejsou žádné smrtelně jedovaté rourkaté houby takového vzhledu. Nezkušení houbaři jej mohou zaměnit s hřibem žlučovým, který má hořkou chuť a s věkem růžovějící póry.
V jakých měsících se vyskytuje kozák březový?
Plodnice se objevují obvykle od léta do pozdního podzimu, nejčastěji od června nebo července do konce října, s vrcholem růstu v září po teplých a vlhkých dnech.
Čím se liší kozák březový od křemenáče osikového?
Křemenáč osikový má oranžový klobouk, dužninu tmavnoucí do šedočerné a namodralou na bázi třeně. U kozáka březového je klobouk šedohnědý a dužnina může slabě růžovět, hnědnout nebo šednout.
Pod jakými stromy roste kozák březový?
Tato houba tvoří mykorhizu výhradně s břízami. Lze se s ní setkat v březových a smíšených lesích, na okrajích hájů i na rašeliništích všude tam, kde rostou břízy.
Které části plodnice se nejlépe hodí ke zpracování?
Nejvíce ceněné jsou klobouky mladých plodnic s pevnou strukturou. Třeně starších hub tuhnou a stávají se dřevnatými, proto se obvykle suší a melou na koření, nebo se jednoduše vyřazují.
Mění dužnina kozáka březového barvu po rozkrojení?
Dužnina typického kozáka březového je bílá nebo krémová a v zásadě nemění barvu po poškození ani nemodrá, na rozdíl od některých jiných kozáků (např. kozáka barvoměnného).
Nadšenec
Spodní strana klobouku
- Délka rourek
- Délka rourek: 8–19 mm.
Názvy a historie
- Platné národní jméno
- koźlarz babka
- Platné vědecké jméno
- Leccinum scabrum
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách klobouk zvedněte a prohlédněte si otisk.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: hnědý.
- Odstín výtrusného prachu
- Odstín výtrusného prachu: olivově hnědý. Odstín výtrusného prachu: Olivově nahnědlá.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: vřetenovitý. Tvar výtrusu: vřetenovitý. Tvar výtrusu: protáhle elipsoidní. Tvar výtrusu: téměř vřetenovitý.
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 13–22 µm, šířka 4–6,5 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
- Zrnitost půdy
- Zrnitost půdy: písčitý.
- Vlhkost půdy
- Vlhkost půdy: suchý.
Vlhkost půdy: Vlhká. - Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: bříza (obecný seznam partnerů).
Historie a kultura
Druh vědecky popsal Jean-Baptiste Bulliard jako Boletus scaber a v roce 1821 jej Samuel Frederick Gray přeřadil do rodu Leccinum, čímž vytvořil platnou kombinaci Leccinum scabrum. V polské lidové tradici a regionálním názvosloví získala tato houba řadu lidových označení, jako je babka, koźlak, brzeziak či podbrzeźniak, která přímo odkazují na její symbiózu s břízou.
V etnomykologických studiích se zdůrazňuje silné postavení kozáků ve sběračské kultuře střední a východní Evropy. Tyto záznamy však zůstávají popisem širší skupiny: v povědomí houbařů fungují kozáci jako souhrnný lidový taxon (Leccinum spp.), v jehož rámci se nerozlišují jednotlivé biologické druhy s hnědými klobouky. Veškeré tradiční představy, staré zvyky při sběru a názvy se tedy v praxi vztahují k celé skupině kozáků vázaných na břízy, a nikoli výhradně k úzce chápanému druhu Leccinum scabrum ve smyslu moderní taxonomie.
Jedlost a bezpečnost
Kozák březový (Leccinum scabrum) je všeobecně uznávaná jedlá houba mírné chuti a jemné lesní vůně. Ke kulinářským účelům se sbírají především mladé, pevné a tuhé plodnice. Zralé a starší exempláře rychle měknou, stávají se houbovitými a náchylnými k nasáknutí vodou, přičemž dužnina v jejich třeních dřevnatí a stává se tvrdou a vláknitou, čímž ztrácejí svou kulinářskou využitelnost.
Tento druh bezpodmínečně vyžaduje před konzumací tepelnou úpravu a nesmí se jíst zasyrova. K základním způsobům přípravy patří vaření, dušení nebo smažení. Během vaření a tepelné úpravy dužnina kozáka březového přirozeně tmavne a získává šedavé až tmavě hnědé zbarvení, což je pro tuto houbu typický znak. Ke kulinářským účelům je třeba používat výhradně zdravé, čerstvé a nepoškozené exempláře a vyřazovat plodnice přezrálé, příliš rozměklé nebo vykazující známky napadení hmyzem.
Stanoviště a výskyt
Kozák březový je mykorhizní houba úzce vázaná na břízy (Betula spp.), zejména na břízu bělokorou a pýřitou. Vyskytuje se v listnatých i smíšených lesích s přítomností tohoto stromu, v mlazinách, čistých březinách a také na rašeliništích, vřesovištích a vlhkých lesních mýtinách. Preferuje kyselá, písčitá a písčitohlinitá podloží.
Geografický areál v určitém pojetí zahrnuje mírné a chladné pásmo Evropy, kde je tento druh hojný. V mykologické literatuře se poukazovalo také na výskyt v jiných oblastech severní polokoule, moderní molekulární výzkumy však nabádají k opatrnosti při zobecňování jeho rozšíření. V novějších publikacích je materiál pocházející z Asie uváděn s výhradou jako Leccinum cf. scabrum z důvodu taxonomických pochybností a nutnosti revize určení.
V podmínkách střední Evropy, včetně Polska, trvá období výskytu plodnic od časného léta do pozdního podzimu. Podle národních fenologických údajů se plodnice objevují od června do listopadu (VI–XI), v závislosti na srážkách a teplotě podkladu.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Źródło bez opisu bibliograficznego · Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Źródło bez opisu bibliograficznego · Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Vědecké názvy a taxonomie
- Platné vědecké jméno
Leccinum scabrum
Leccinum scabrum (Bull.) Gray należy do rodziny Boletaceae w rzędzie Boletales (podklasa Agaricomycetidae, klasa Agaricomycetes, typ Basidiomycota, królestwo Fungi). Połączenie Graya zostało opublikowane w Natural Arrangement of British Plants 1:647 (1821). Bazionimem jest Boletus scaber Bull. z dzieła Herbier de la France 3, tablica 132. Rejestr Species Fungorum podaje datę 1783 [1782–83], natomiast rewizja taksonomiczna z 2005 r. wskazuje 1782 r.; rozbieżność ta pozostaje odnotowaną różnicą bibliograficzną.
Wśród historycznych ujęć i kombinacji taksonomicznych znajdują się m.in. Suillus scaber, Krombholzia scabra, Gyroporus scaber, Ceriomyces scaber, Tubiporus scaber, Krombholziella scabra oraz Trachypus scaber. W piśmiennictwie mykologicznym opisano również liczne odmiany i formy pod odrębnymi nazwiskami autorów i datami. Przynależność do dzisiejszej synonimii nie oznacza jednak tożsamego zakresu każdego dawnego ujęcia taksonomicznego.
Rozsah taxonu a omezení určování
W literaturze odnotowano angielską nazwę zwyczajową Birch Bolete (bez przypisania do konkretnego obszaru anglojęzycznego). Niemiecka nazwa Gemeiner Birkenpilz nie ma bezpośredniego potwierdzenia w wykorzystanych źródłach.
Den Bakker i Noordeloos w rewizji z 2005 r. przyjęli szerokie ujęcie Leccinum scabrum, włączając do niego taksony opisywane pod nazwami roseofractum, avellaneum, rigidipes oraz subcinnamomeum. W tym ujęciu różowienie lub czerwienienie miąższu mieści się w naturalnej zmienności gatunku. Leccinum melaneum został w tej pracy potraktowany jako odrębny takson, a hipoteza o jego mieszańcowym pochodzeniu pozostaje nierozstrzygnięta (czeska literatura ujmuje go jako odmianę lub osobny gatunek). Z kolei Leccinum rotundifoliae w rewizji z 2005 r. uznano za odrębny takson, podczas gdy Species Fungorum włącza tę nazwę do synonimii L. scabrum.
Takson Leccinum oxydabile jest obecnie włączany do synonimii Leccinum scabrum w bazie Species Fungorum, choć inne bazy danych i rejestry mykologiczne (takie jak Checklist, GBIF czy MycoBank) bywają przywoływane w literaturze w kontekście odmiennych przypisań taksonomicznych. Cech dawnych ujęć tego taksonu nie należy bezkrytycznie przenosić na współcześnie definiowany gatunek.
Brak sinienia miąższu nie jest cechą wystarczającą do bezwzględnego oznaczenia gatunku, gdyż nietypowe owocniki innych gatunków (np. Leccinum snellii czy L. schistophilum) mogą nie wykazywać typowej dla siebie reakcji barwnej. Oznaczenie wymaga uwzględnienia budowy mikroskopowej skórki, zarodników i kaulocystyd. Reakcje chemiczne miąższu (brak reakcji lub słabe czerwienienie z formaliną oraz próby z FeSO4) mają zmienny przebieg zależny od wieku i wilgotności owocnika, przez co nie stanowią jednoznacznych kryteriów kluczowych.
- Zakres ujęcia taksonomicznego
Leccinum scabrum (Bull.) Gray; each literature report retains its own explicitly stated source concept. Den Bakker and Noordeloos2005 pp.547–550 are the wider concept including L.roseofractum, L.avellaneum and L.rigidipes. Gargano material is SAF545. No assignment of neighbouring species descriptions or subsection Scabra general characters.
[9] [10]
Ekologie a rozšíření
- Četnost výskytu
- Polsko: Četnost výskytu: hojný. [10]
Laboratorní diagnostika
Strukturované údaje
Bazidie
Kaulocystidy
Hymeniální cystidy
- Délka hymeniální cystidy
- Délka hymeniální cystidy: 30–50 µm. [4]
- Tvar hymeniální cystidy
- Tvar hymeniální cystidy: vřetenovitá až lahvicovitá. [4]
Tvar hymeniální cystidy: válcovitý. [4]
Tvar hymeniální cystidy: kyjovitý. [4]
Tvar hymeniální cystidy: Lahvicovitá. [4] - Šířka hymeniální cystidy
- Šířka hymeniální cystidy: 5,5–7,5 µm. [4]
Pokožka klobouku
- Šířka prvků pokožky klobouku
- Šířka prvků pokožky klobouku: 3,5–8 µm. [4]
Šířka prvků pokožky klobouku: 8–17 µm. [4]
Šířka prvků pokožky klobouku: 7,5–16 µm. [4] - Inkrustace hyf pokožky
- Inkrustace hyf pokožky: přítomný. [4]
- Barva pigmentu pokožky
- Barva pigmentu pokožky: hnědý. [4]
- Stavba pokožky klobouku
- Stavba pokožky klobouku: kutis. [4]
- Tvar koncové buňky pokožky klobouku
- Tvar koncové buňky pokožky klobouku: kuželovitý. [4]
Výtrusy
- Obsah výtrusu
- Obsah výtrusu: s vakuolami. [8]
- Kapky uvnitř výtrusu
- Kapky uvnitř výtrusu: přítomný. [8]
- Délka výtrusu
- Délka výtrusu: 13–20 µm. [10]
Délka výtrusu: 13,5–22 µm. [4]
Délka výtrusu: 13–21 µm. [8]
Délka výtrusu: 13–20 µm. [5] - Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 2,5–3,5. [4]
- Tvar výtrusu
- Tvar výtrusu: vřetenovitý. [4]
Tvar výtrusu: vřetenovitý. [10]
Tvar výtrusu: protáhle elipsoidní. [8]
Tvar výtrusu: téměř vřetenovitý. [8] - Suprahilární deprese bazidiospory
- Suprahilární deprese bazidiospory: přítomný. [4]
- Tloušťka stěny výtrusu
- Tloušťka stěny výtrusu: tenkostěnný. [8]
Materiál a metody výzkumu
Metody i zapisy źródłowe — Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki; Długość kaulocystyd; Szerokość kaulocystyd; Długość cystydy hymenialnej; Szerokość cystydy hymenialnej; Szerokość elementów skórki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [4]
Kształt kaulocystyd; Kształt cystydy hymenialnej; Inkrustacja strzępek skórki; Barwa pigmentu skórki; Organizacja skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.” [4]
Metody i zapisy źródłowe — Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.
Identyfikacja kropli: nierozstrzygnięta.
Zawartość zarodnika; Krople wewnątrz zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika — zapis źródłowy: „Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [8]
Metody i zapisy źródłowe — Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [10]
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.” [10]
Metody i zapisy źródłowe — Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [5]
Ověření výskytu — rozsah a omezení
Materiał: Pierwotna kolekcja autora atlasu z Kotliny Kłodzkiej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[10]Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje dořešení.
- Vazby dřívějších zjištění vyžadují opětovnou kontrolu.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Právní základ a rozsah hodnocení
Předpisy pro lokalitu: Polsko
Podklad pro informace o ochraně
Koźlarz babka nie jest objęty w Polsce gatunkową ochroną ścisłą ani częściową.
[6]Podklad pro informace o obchodu
Koźlarz babka (wszystkie odmiany) figuruje w polskim wykazie grzybów dopuszczonych do obrotu i produkcji przetworów grzybowych, poz.15.
[7]Nejdůležitější látky a jejich účinek
Analizę biochemiczną wysuszonej i zmielonej próby SAF545 przeprowadziło laboratorium EcamRicert (raport 20LA09820 z 28 lipca 2020 r.) w trzech powtórzeniach technicznych, metodami analitycznymi według Baldini i in. (1996), z przelicznikiem białka N × 6,25 i oszacowaniem niepewności według UNI ISO 3534-1:2000.
Skład podstawowy i wartość energetyczna suchej zmielonej próby (wartości na 100 g):
- Sucha masa: 91,29 ± 0,38 g
- Wilgotność: 8,71 ± 0,38 g
- Białko ogólne (N × 6,25): 31,7 ± 1,3 g
- Tłuszcz ogólny: 3,64 ± 0,22 g
- Węglowodany: 31,57 ± 2,44 g
- Błonnik pokarmowy (wysokocząsteczkowy): 18,9 ± 2,0 g
- Popiół: 5,48 ± 0,30 g
- Wartość energetyczna: 324 ± 5 kcal (1361 ± 21 kJ).
Zawartość cukrów w suchej zmielonej próbie (g/100 g):
- Glukoza: 2,63 ± 0,41
- Fruktoza: 0,334 ± 0,053
- Laktoza: < 0,010
- Sacharoza: < 0,010
- Maltoza: < 0,010
- Cukry ogółem: 2,964 ± 0,413.
Zawartość witamin (%) i składników mineralnych (mg/kg) w suchej zmielonej próbie:
- Witamina D3: < 0,00002%
- Witamina B1: < 0,00001%
- Witamina B2: 0,0016 ± 0,0002%
- Witamina B3: 0,0146 ± 0,0015%
- Witamina B5: 0,0019 ± 0,0002%
- Witamina B6: < 0,00003%
- Witamina B8: < 0,00003%
- Witamina B12: < 0,000005%
- Sód (Na): 0,028 ± 0,006 mg/kg
- Potas (K): 2,25 ± 0,53 mg/kg
- Żelazo (Fe): < 0,003 mg/kg
- Wapń (Ca): < 0,025 mg/kg
- Fosfor (P): 3710,0 ± 670,0 mg/kg
- Magnez (Mg): 590,0 ± 130,0 mg/kg
- Cynk (Zn): 71,0 ± 13,0 mg/kg
- Miedź (Cu): 16,8 ± 3,2 mg/kg
- Selen (Se): 7,4 ± 1,8 mg/kg
- Mangan (Mn): 6,6 ± 1,3 mg/kg
- Nikiel (Ni): 1,01 ± 0,18 mg/kg
- Chrom (Cr): 0,84 ± 0,16 mg/kg
- Siarka całkowita (S): 8200,0 ± 1,50 mg/kg.
Profil kwasów tłuszczowych w suchej zmielonej próbie (g/100 g):
- Kwas masłowy (4:0): < 0,010
- Kwas kapronowy (6:0): < 0,010
- Kwas enantowy (7:0): < 0,010
- Kwas kaprylowy (8:0): < 0,010
- Kwas kaprynowy (10:0): < 0,010
- Kwas kaproleinowy (10:1): < 0,010
- Kwas laurynowy (12:0): < 0,010
- Kwas lauroleinowy (12:1 n-3): < 0,010
- Kwas izomirystynowy (14:0 iso): 0,0010
- Kwas mirystynowy (14:0): 0,0073 ± 0,0017
- 14:1 (suma): < 0,0010
- Kwas pentadekanowy (15:0): 0,0094 ± 0,0021
- 15:1 (suma): 0,0093 ± 0,0021
- Kwas sarcinowy (15:0 ante-iso): < 0,0010
- Kwas izopalmitynowy (16:0 iso): < 0,0010
- Kwas anteizopalmitynowy (16:0 ante-iso): < 0,0010
- Kwas palmitynowy (16:0): 0,372 ± 0,056
- 17:0 ante-iso: 0,0088 ± 0,0020
- Kwas margarynowy (17:0): 0,00366 ± 0,00100
- Kwas margarynowy (17:0 iso): < 0,0010
- 17:1 (suma): 0,0098 ± 0,0020
- Kwas palmitooleinowy (16:1 suma): 0,0224 ± 0,0048
- Kwas izostearynowy (18:0 iso): 0,0348 ± 0,0074
- Kwas anteizostearynowy (c-18:0 ante-iso): < 0,0010
- Kwas stearynowy (18:0): 0,075 ± 0,016
- Kwas oleinowy (18:1 suma): 1,05 ± 0,13
- 19:0: < 0,0010
- 19:0 ante-iso: < 0,0010
- 19:1 (suma): < 0,0010
- Kwas arachidowy (20:0): 0,0055 ± 0,0013
- Kwas izoarachidowy (20:0 iso): < 0,0010
- Kwas α-linolenowy (18:3 suma): 0,0085 ± 0,0017
- Kwas gadoleinowy (20:1 suma): 0,0145 ± 0,0031
- Sprzężony kwas linolowy (suma 18:2 CLA): < 0,0010
- Kwas heneikozanowy (21:0): < 0,0010
- Kwas stearydonowy (18:4 n-3): 0,0146 ± 0,0031
- Kwas behenowy (22:0): 0,0042 ± 0,0011
- 22:1: 0,00206 ± 0,00077
- Kwas lignocerynowy (24:0): 0,00231 ± 0,00080
- Wielonienasycone kwasy tłuszczowe >C20: 0,00183 ± 0,00074
- Kwasy tłuszczowe nasycone (SFA): 0,523 ± 0,059
- Kwasy tłuszczowe jednonienasycone (MUFA): 1,11 ± 0,12
- Kwasy tłuszczowe wielonienasycone (PUFA): 1,98 ± 0,23
- Stosunek kwasów PUFA/MUFA: 1,78 ± 0,29
- Stosunek kwasów PUFA/SFA: 3,79 ± 0,62.
Zawartość wolnych aminokwasów i związków pokrewnych w suchej zmielonej próbie (g/100 g):
- Kwas asparaginowy: 0,1124 ± 0,0082
- Kwas glutaminowy: 0,4318 ± 0,0313
- Alanina: 1,0600 ± 0,0769
- Arginina: 0,4556 ± 0,0331
- Asparagina: 0,1575 ± 0,0114
- Cystyna: < 0,0100
- Prolina: 0,1005 ± 0,0073
- Fenyloalanina: 0,0311 ± 0,0024
- Glicyna: 0,2679 ± 0,0194
- Glutamina: 0,9199 ± 0,0667
- Izoleucyna: 0,0222 ± 0,0017
- Histydyna: 0,1353 ± 0,0098
- Leucyna: 0,0300 ± 0,0023
- Lizyna: 0,2170 ± 0,0158
- Metionina: < 0,0100
- Ornityna: 0,2085 ± 0,0151
- Seryna: 0,3202 ± 0,0232
- Tyrozyna: 0,0538 ± 0,0040
- Treonina: 0,2762 ± 0,0200
- Walina: 0,1220 ± 0,0089
- Kwas γ-aminomasłowy (GABA): 0,3900 ± 0,0283
- Kwas α-aminomasłowy: < 0,0010
- Wolne aminokwasy ogółem: 5,31 ± 0,13.
W profilu lipidowym zmielonej próby wielonienasycone kwasy tłuszczowe (PUFA) stanowią 1,98 ± 0,23 g/100 g, jednonienasycone (MUFA) 1,11 ± 0,12 g/100 g, a nasycone (SFA) 0,523 ± 0,059 g/100 g, przy proporcjach PUFA/MUFA wynoszącej 1,78 ± 0,29 oraz PUFA/SFA równej 3,79 ± 0,62. Pula wolnych aminokwasów wynosi 5,31 ± 0,13 g/100 g, z istotnym udziałem alaniny, glutaminy oraz kwasu γ-aminomasłowego (GABA, 0,3900 ± 0,0283 g/100 g).
Dane analityczne badanej próby wykazują następujące poziomy wybranych mikroskładników: witamina D3 poniżej 0,00002%, żelazo poniżej 0,003 mg/kg, wapń poniżej 0,025 mg/kg, sód 0,028 ± 0,006 mg/kg, a potas 2,25 ± 0,53 mg/kg suchej masy, przy wyższych poziomach fosforu (3710,0 ± 670,0 mg/kg) i siarki całkowitej (8200,0 ± 1,50 mg/kg).
Średnice stref zahamowania wzrostu w próbie krążkowej wyniosły:
- Listeria monocytogenes ATCC 19114: MAE: 13,5 ± 0,2 mm; UAE: 12,0 ± 0,1 mm (różnica istotna statystycznie, P < 0,01)
- Staphylococcus aureus subsp. aureus ATCC 33862: MAE: 12,5 ± 0,1 mm; UAE: 12,5 ± 0,1 mm
- Salmonella enterica subsp. enterica ATCC 13076: MAE: 11,5 ± 0,2 mm; UAE: 11,0 ± 0,1 mm
- Escherichia coli ATCC 25922: MAE: 10,5 ± 0,2 mm; UAE: 10,0 ± 0,2 mm.
Stopień zahamowania wzrostu bakterii w teście mikrorozcieńczeń (kategorie autorów: brak: −; niskie ≤35%: +; umiarkowane >35–70%: ++; wysokie >70%: +++):
100 mg/mL
- L. monocytogenes: MAE 99,80% (+++); UAE 94,90% (+++)
- S. aureus: MAE 99,75% (+++); UAE 95,38% (+++)
- S. enterica: MAE 99,76% (+++); UAE 99,79% (+++)
- E. coli: MAE 99,83% (+++); UAE 97,97% (+++)
50 mg/mL
- L. monocytogenes: MAE 92,92% (+++); UAE 79,58% (+++)
- S. aureus: MAE 61,93% (++); UAE 66,43% (++)
- S. enterica: MAE 81,77% (+++); UAE 89,94% (+++)
- E. coli: MAE 93,40% (+++); UAE 80,07% (+++)
25 mg/mL
- L. monocytogenes: MAE 74,11% (+++); UAE 57,60% (++)
- S. aureus: MAE 40,82% (++); UAE 46,76% (++)
- S. enterica: MAE 46,65% (++); UAE 67,62% (++)
- E. coli: MAE 75,51% (+++); UAE 66,67% (++)
12,5 mg/mL
- L. monocytogenes: MAE 39,15% (++); UAE 31,08% (+)
- S. aureus: MAE 25,04% (+); UAE 20,75% (+)
- S. enterica: MAE 55,39% (++); UAE 43,44% (++)
- E. coli: MAE 51,32% (++); UAE 51,94% (++)
6,25 mg/mL
- L. monocytogenes: MAE 30,12% (+); UAE 18,33% (+)
- S. aureus: MAE 24,32% (+); UAE 22,30% (+)
- S. enterica: MAE 43,22% (++); UAE 42,82% (++)
- E. coli: MAE 46,73% (++); UAE 39,26% (++)
3,125 mg/mL
- L. monocytogenes: MAE 23,97% (+); UAE 15,58% (+)
- S. aureus: MAE 19,03% (+); UAE 16,33% (+)
- S. enterica: MAE 37,26% (++); UAE 28,90% (+)
- E. coli: MAE 27,61% (+); UAE 19,13% (+)
1,5625 mg/mL
- L. monocytogenes: MAE 17,50% (+); UAE 12,13% (+)
- S. aureus: MAE 6,38% (+); UAE 10,63% (+)
- S. enterica: MAE 18,68% (+); UAE 20,70% (+)
- E. coli: MAE 23,18% (+); UAE 20,84% (+)
0,78125 mg/mL
- L. monocytogenes: MAE 14,19% (+); UAE 11,59% (+)
- S. aureus: MAE 4,13% (+); UAE 10,84% (+)
- S. enterica: MAE 5,07% (+); UAE 7,10% (+)
- E. coli: MAE 0,00% (−); UAE 10,52% (+).
W teście mikrorozcieńczeń oba ekstrakty w stężeniu 100 mg/mL silnie hamowały wzrost wszystkich czterech badanych szczepów (>70%). Przy stężeniu 50 mg/mL ekstrakt UAE hamował wzrost E. coli na wysokim poziomie 80,07%. Przy stężeniu 6,25 mg/mL ekstrakt UAE hamował wzrost S. enterica na poziomie umiarkowanym (42,82%). Przy najniższym testowanym stężeniu 0,78125 mg/mL ekstrakt MAE nie wykazywał hamowania wzrostu E. coli (0,00%), podczas gdy pozostałe warianty wykazywały niskie wartości hamowania.
Badania aktywności biologicznej ekstraktów wodnych opublikowano w czasopiśmie Mycology (online 2024, wydanie drukowane 16(1), 2025, s. 402–412; erratum z 2025 r. pod DOI 10.1080/21501203.2025.2461915). Przedstawione wyniki mają charakter wyłącznie laboratoryjnych testów in vitro.
Stanoviště a výskyt
Stanoviště, oblast a sezóna
Koźlarz babka tworzy ektomikoryzę wyłącznie z brzozami (Betula). Wyrasta na ziemi, pojedynczo, w małych grupach lub gromadnie, w lasach, zaroślach, a także poza lasem – w parkach, ogrodach i na trawnikach pod brzozami. Preferuje gleby piaszczyste, suche do umiarkowanie wilgotnych, o odczynie słabo kwaśnym, pojawiając się m.in. w ubogich murawach z kostrzewą czerwoną (Festuca rubra) i śmiałkiem pogniecionym (Deschampsia flexuosa).
W Czechach koźlarz babka jest bardzo pospolity i występuje od nizin po tereny górskie w okresie od czerwca do listopada (udokumentowane znaleziska pochodzą m.in. z kraju środkowoczeskiego – 6 X 2024, pilzneńskiego – 18 VIII 2023, zlińskiego – 28 IX 2018 i Wysoczyzny – 14 IX 2017).
Gatunek jest szeroko rozprzestrzeniony w Europie (bardzo pospolity m.in. w Holandii) i wykazuje prawdopodobny zasięg okołobiegunowy; materiały zielnikowe pochodzą m.in. z Holandii, Finlandii oraz prowincji Ontario w Kanadzie.
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Kladská kotlina | VI–XI |
|
Materiály
Herbářové položky
- 44
Nizozemsko; Drenthe, Emmen; 1999-10-02; H.C. den Bakker
[2]- 50
Nizozemsko; Drenthe, Nieuw Amsterdam; 1999-10-04; H.C. den Bakker
[2]- 54
Nizozemsko; Drenthe, Borger, vicinity of cottage park Land van Bartje; 1999-10-05; H.C. den Bakker
[2]- 01-009
Nizozemsko; Drenthe, Gieten, Boekweitveentje; 2001; R. Enzlin
[2]- 48
Nizozemsko; Drenthe, Hoogeveen; leg.B.de Vries; 1999-10-03; H.C. den Bakker
[2]- 62
Nizozemsko; Noord-Holland, Amsterdamse Waterleiding Duinen, Eiland van Rolvers; 1999-10-23; H.C. den Bakker
[2]- 58
Nizozemsko; Zuid-Holland, Wassenaar, Meijendel; 1999-10-17; H.C. den Bakker
[2]- 42
Nizozemsko; Zuid-Holland, Voorschoten; C.Bas; 1999-09-30; H.C. den Bakker
[2]- 124
Nizozemsko; Utrecht, Zeist, Soesterberg; 2000-10-06; H.C. den Bakker
[2]- 1+2 (L), designated epitype
Francie; Guyancourt, along N12, vicinity of Versailles; 2001-09-27; J. van Brummelen
[2]- Sběr
Francie; Orne, Foret de Belleme; 2001-09-28; Van Brummelen
[2]- 95
Norsko; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 91
Norsko; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 87
Norsko; Sogn og Fjordane, Sogndalsfjøra; IX 2000; H.C. den Bakker
[2]- 239
Spojené království; Scotland, Inverness-shire, Aberarder Forest; 2001-09-13; H.C. den Bakker
[2]- 231
Spojené království; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 237
Spojené království; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 4399 (E), holotype L.rigidipes
Spojené království; Scotland, Inverness-shire, Abernethy Forest; 1972-08-31; P. Orton
[2]- 4944 (E), holotype L.roseofractum
Spojené království; Scotland, Ross & Cromarty, Loch Maree; R. Watling
[2]- 22
Švédsko; Jämtland, Borgsjö; 1999-08-24; H.C. den Bakker
[2]- 80
Švédsko; Åre; 2000-09-04; H.C. den Bakker
[2]- 2003076
Spojené království; Wales, South Glamorgan, Merthyr-mawr sand dunes; A. Hills
[2]- SAF545
Polsko; Białowieża forest, Podlaskie; literal published location, not geocoded; summer; exact date/year unreported
[2]
Zdroje
- leccinum_scabrum.source-collections
- src-bakker 2005
- src-cms-scabrum
- src-eli-protection-2014
- src-eli-trade-2026
- src-gargano 2024
- src-gbif-leccinum_scabrum
- src-snowarski-scabrum