
Ядомы

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.
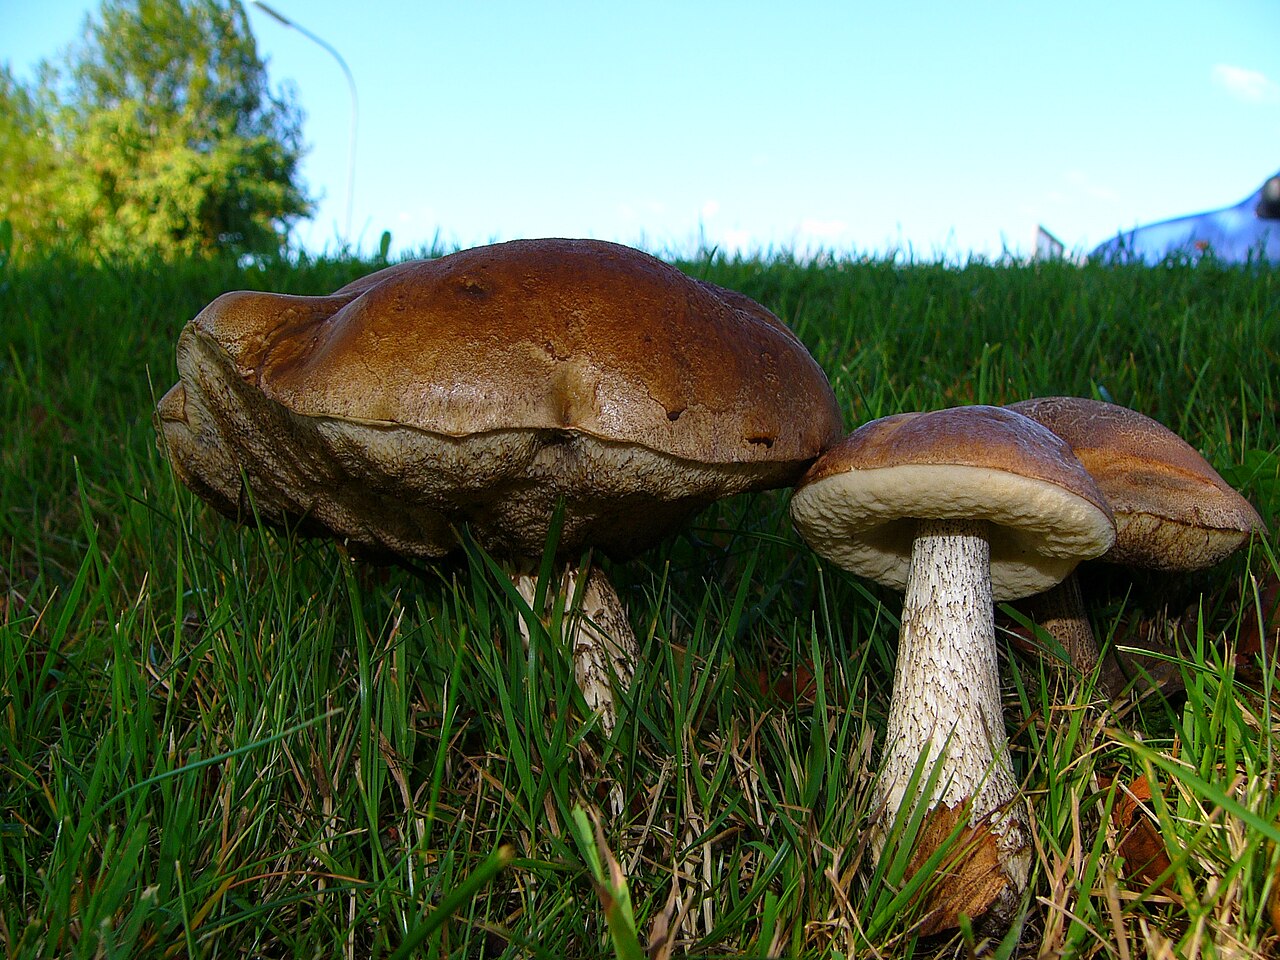
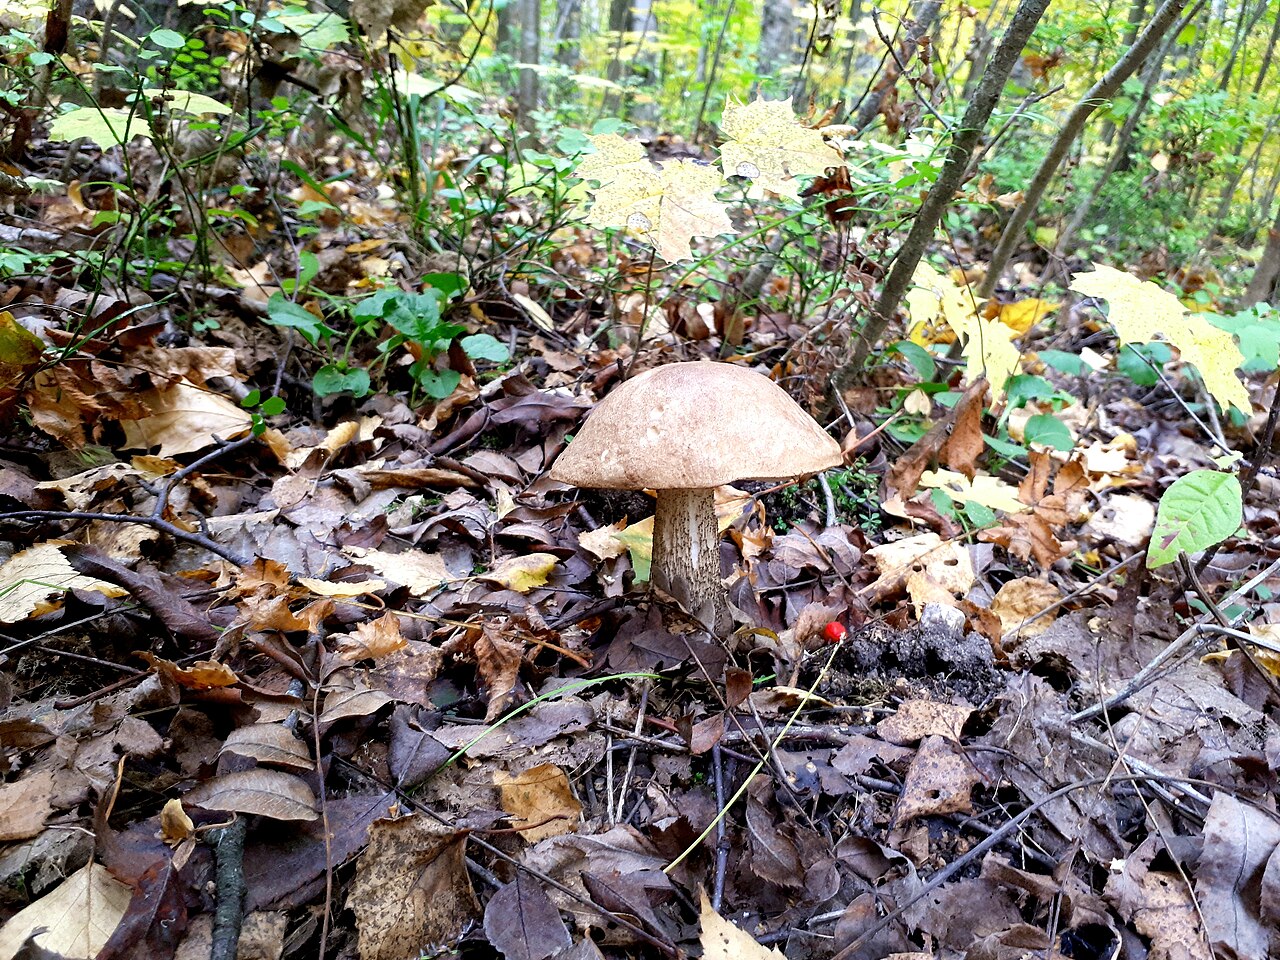
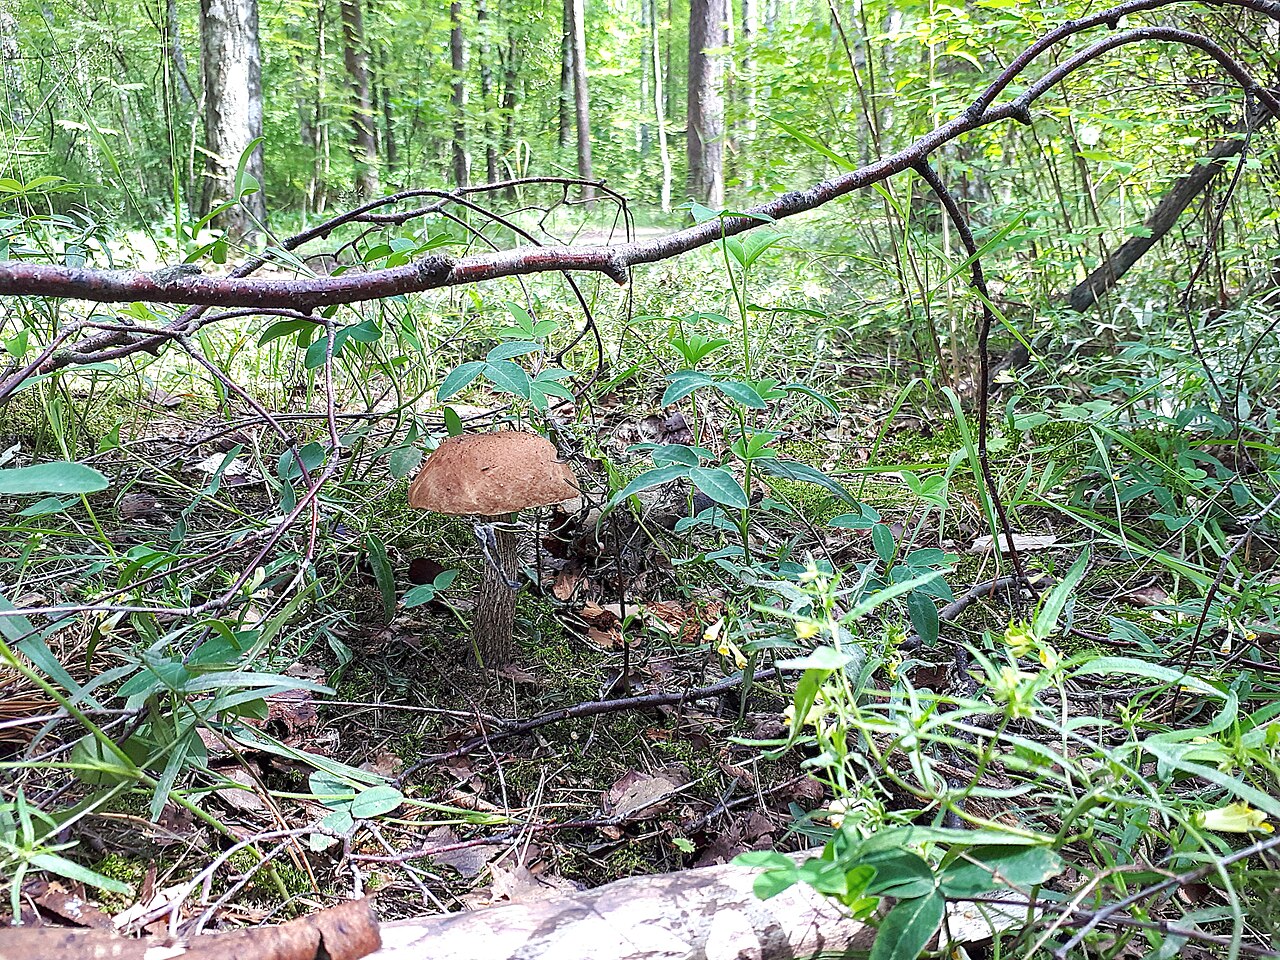
Падбярозавік звычайны (Leccinum scabrum) — гэта звычайны ў Польшчы ядомы грыб, які ўтварае мікарызу з бярозамі. Сустракаецца ў лісцевых і мяшаных лясах з лета да восені. Шапка падушкападобная, у адценнях шэрага, карычневага або охрыстага колеру, з сухой і гладкай паверхняй. Гіменафор утвораны дробнымі трубачкамі з белаватымі порамі, якія з узростам шарэюць. Ножка стройная, светлая, пакрытая цёмнымі лускавінкамі. Мякаць белаватая і ў цэлым не змяняе колеру пасля разрэзвання. Цэніцца за далікатны грыбны смак.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у старых пладовых цел: Форма капялюшыка: плоскі.
Форма капялюшыка: выпуклы. - Покрыва капялюшыка
- Покрыва капялюшыка: замшавая.
у маладых пладовых цел: Покрыва капялюшыка: лямцаватая.
у спелых пладовых цел: Покрыва капялюшыка: голая.
у спелых пладовых цел: Покрыва капялюшыка: лускаватая. - Ліпкасць і слізістасць капялюшыка
- у мокрым стане: Ліпкасць і слізістасць капялюшыка: ліпкі.
у мокрым стане: Ліпкасць і слізістасць капялюшыка: слізісты. - Колер капялюшыка
- Колер капялюшыка: цёмна-карычневы.
Колер капялюшыка: жоўта-карычневай.
Колер капялюшыка: карычневы.
Колер капялюшыка: вохрыста-карычневы.
Колер капялюшыка: чорна-карычневы.
Колер капялюшыка: шэра-карычневы.
Колер капялюшыка: арэхава-карычневы.
Колер капялюшыка: чырвона-карычневы. - Размяшчэнне краю
- Размяшчэнне краю: загнуты ўніз.
Размяшчэнне краю: загнуты ўсярэдзіну. - Выступ краю капялюшыка за гіменафар
- Выступ краю капялюшыка за гіменафар: не выступае за гіменафор.
Выступ краю капялюшыка за гіменафар: выступае за гіменафар. - Дыяметр капялюшыка
- Дыяметр капялюшыка складае 30–200 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
Трубачкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (трубачкі).
- Шырыня прырастання гіменафара
- Шырыня прырастання гіменафара: шырока прырослы (трубачкі).
- Колер пор пасля пашкоджання
- Колер пор пасля пашкоджання: карычняваты.
- Натуральны колер пор
- у спелых пладовых цел: Натуральны колер пор: шэра-карычневы.
у маладых пладовых цел: Натуральны колер пор: белы. - Натуральны колер трубачак
- у спелых пладовых цел: Натуральны колер трубачак: шэра-карычневы.
у маладых пладовых цел: Натуральны колер трубачак: белаватая.
Ножка і аснова
- Форма ножкі
- Форма ножкі: цыліндрычны.
Форма ножкі: булавападобны. - Аснова ножкі
- Аснова ножкі: булавападобная.
- Колер ножкі
- Колер ножкі: белаватая.
Колер ножкі: жаўтаваты.
Колер ножкі: светла-карычневы. - Рэльеф паверхні ножкі
- Рэльеф паверхні ножкі: баразнаваты.
- Покрыва паверхні ножкі
- Покрыва паверхні ножкі: лускаватая.
- Колер арнаментацыі ножкі
- Колер арнаментацыі ножкі: чарнаваты.
Колер арнаментацыі ножкі: шэраваты.
Колер арнаментацыі ножкі: бледна-карычневы.
Колер арнаментацыі ножкі: чорны.
Колер арнаментацыі ножкі: шэра-карычневы. - Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
- Кансістэнцыя ножкі
- Кансістэнцыя ножкі: цвёрды.
Кансістэнцыя ножкі: валакністы. - Даўжыня ножкі
- Даўжыня ножкі: 50–200 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 10–55 mm.
Мякаць
- Колер мякаці
- Колер мякаці: белаватая.
Колер мякаці: белы.
Колер мякаці: шэраваты. - Шчыльнасць мякаці
- у маладых пладовых цел: Шчыльнасць мякаці: шчыльны.
у старых пладовых цел: Шчыльнасць мякаці: мяккі (мякаць капялюшыка). - Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: без змены колеру.
Колер мякаці пасля пашкоджання: без змены колеру.
Колер мякаці пасля пашкоджання: ружаваты.
Колер мякаці пасля пашкоджання: чырванаваты.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: парк.
Месцапражыванне: сад. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: невялікімі групамі.
Характар росту пладовых цел: групамі. - Частата знаходак
- Частата знаходак: звычайны.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да лістапада.
- Арэал распаўсюджання
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
Права
- Ахова
- У Польшчы Leccinum scabrum не падлягае строгай або частковай відавой ахове.
- Гандаль
- Leccinum scabrum (усе разнавіднасці) уключаны ў польскі пералік грыбоў, дапушчаных да абароту і вытворчасці грыбных прадуктаў, пазіцыя 15.
З чым можна паблытаць
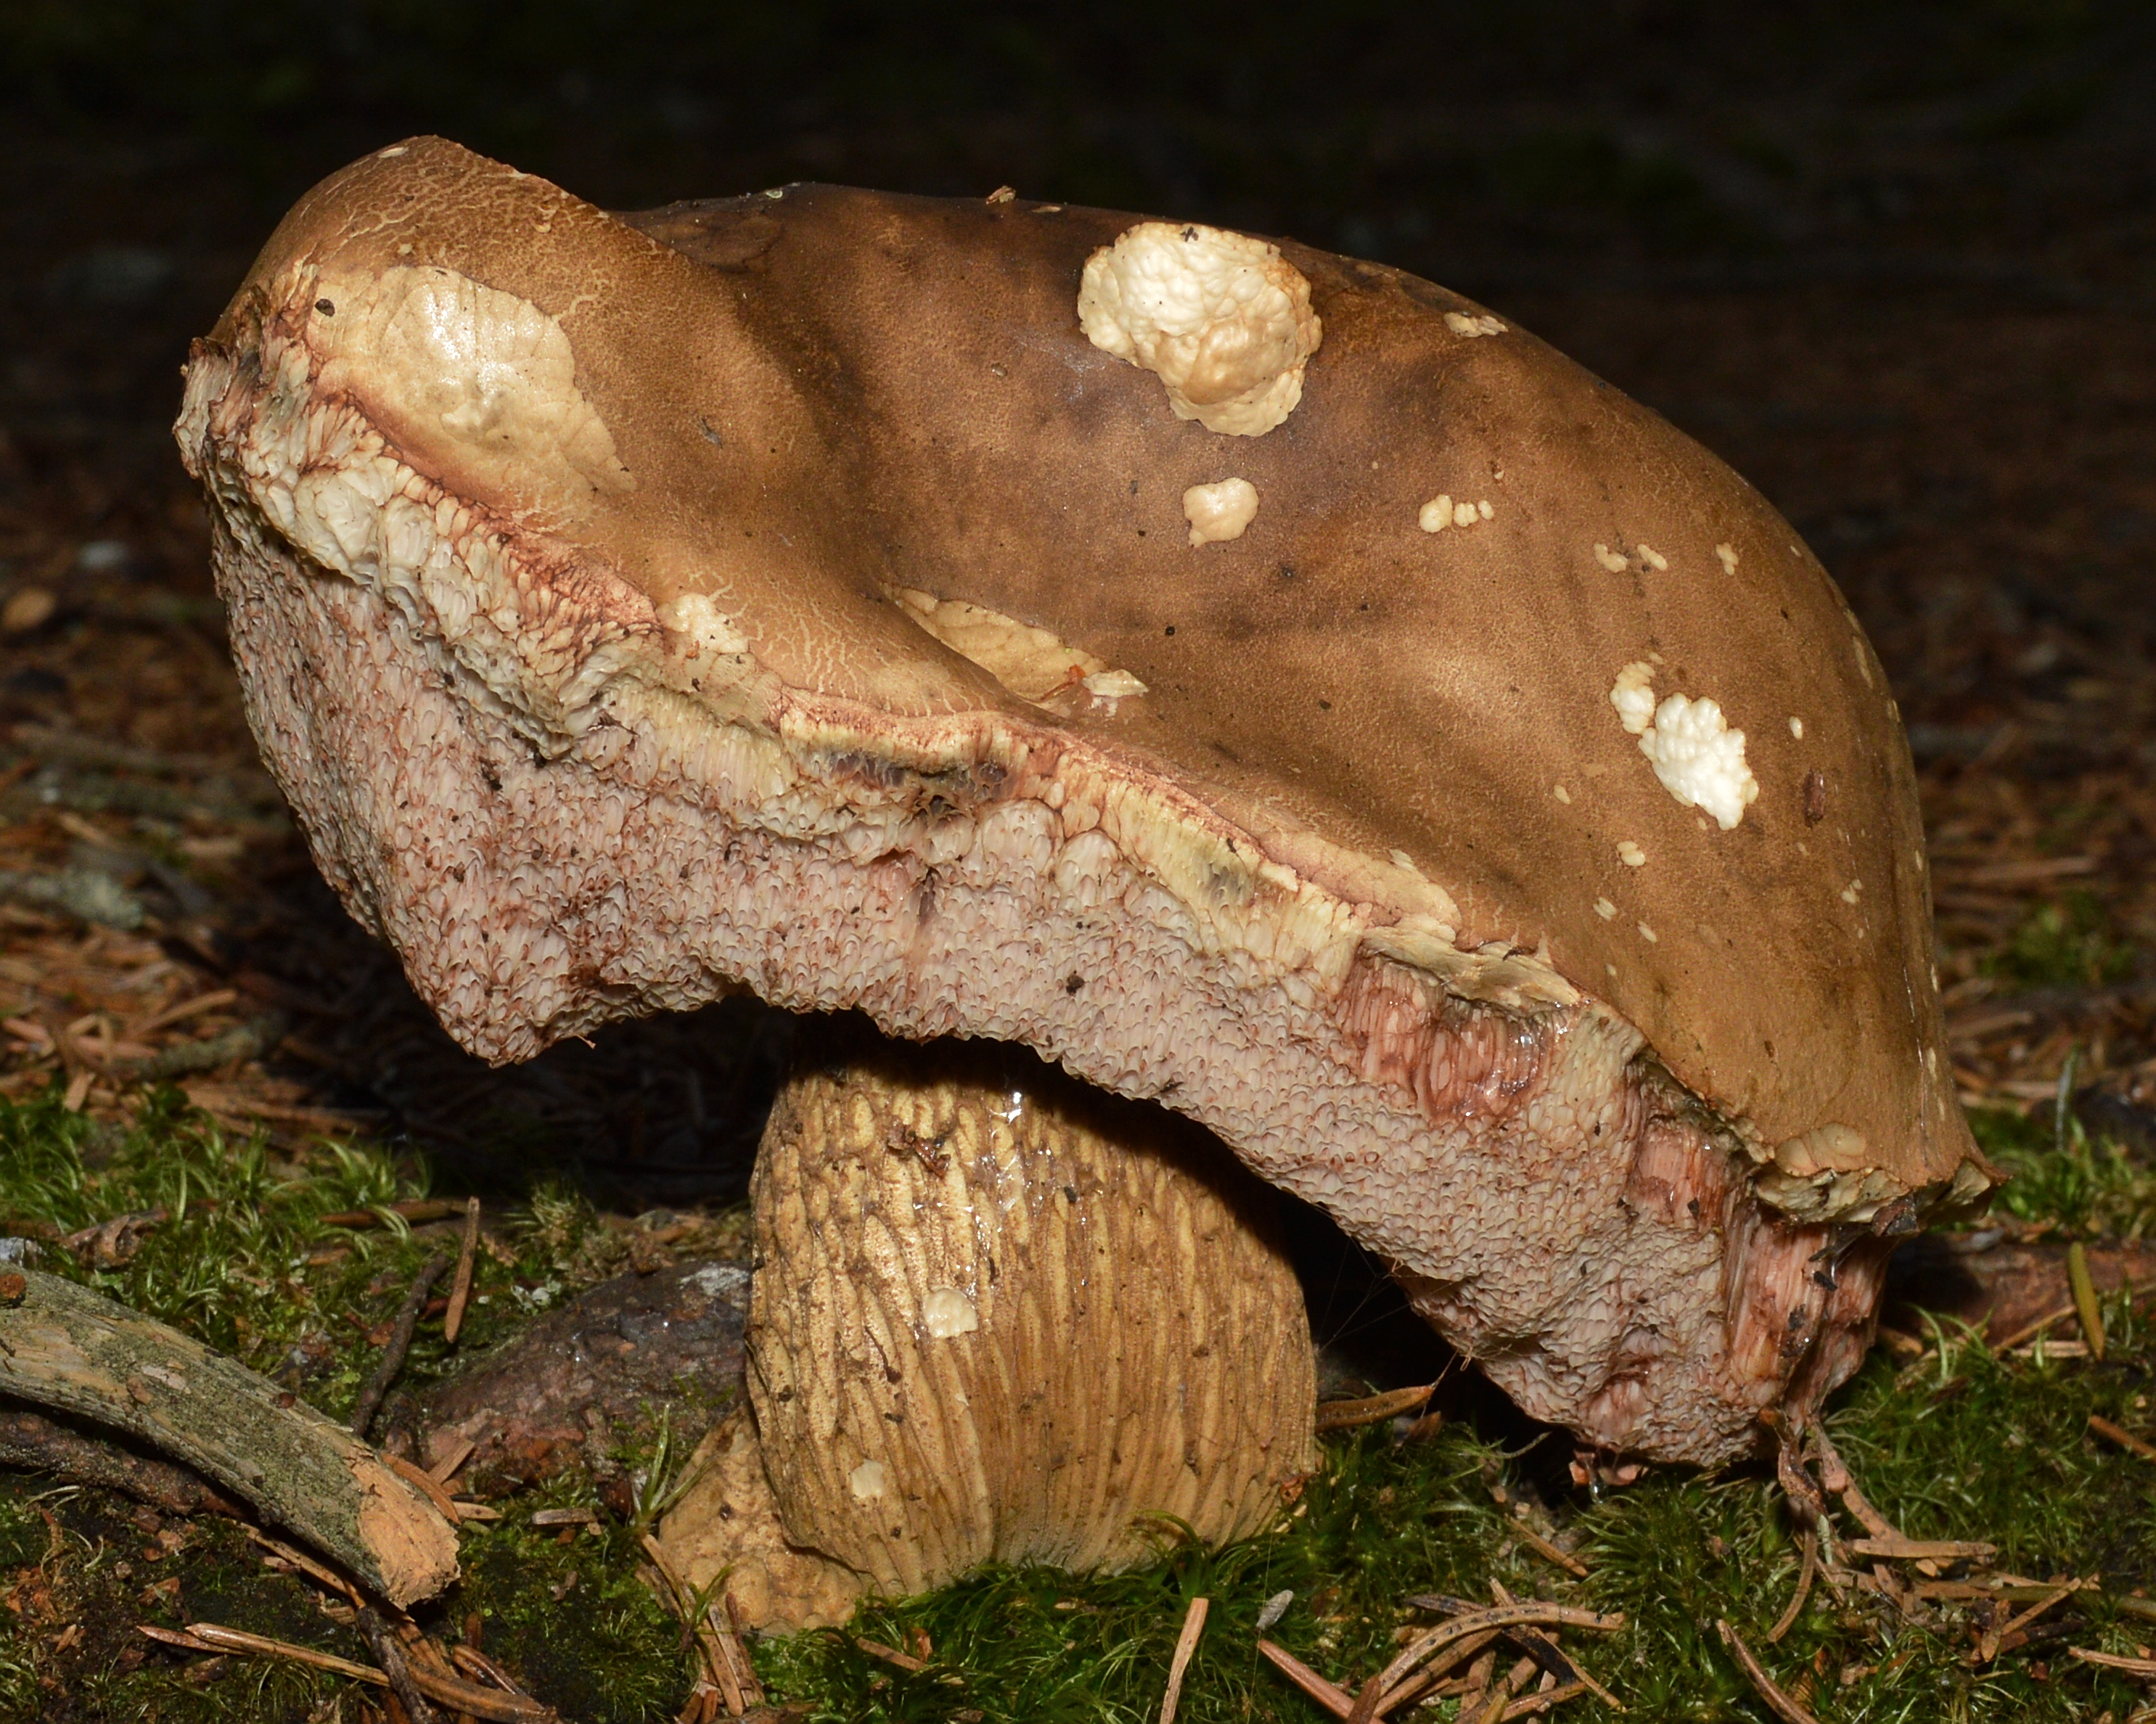
Tylopilus felleus
Асноўныя адрозненні
Падбярозавік звычайны (Leccinum scabrum) можа нагадваць старэйшыя, перарослыя пладовыя целы гарчака. Адрозніваецца белымі трубачкамі без ружовага адцення і ножкай, пакрытай цёмнымі лускавінкамі, без жаўтаватага фону і без сеткі.
Leccinum variicolor
Асноўныя адрозненні
Падбярозавік рознакаляровы (Leccinum variicolor) расце таксама пад бярозамі, звычайна на больш вільготных месцах. Адрозніваецца выразным сіне-зялёным афарбоўваннем мякаці каля асновы ножкі, запаволеным пачырваненнем мякаці і часта плямістай, ад цёмна-шэрай да карычневай шапкай.
Leccinum cyaneobasileucum
Асноўныя адрозненні
Падбярозавік беланожкавы (Leccinum cyaneobasileucum) адрозніваецца сіне-зялёным афарбоўваннем асновы ножкі, як правіла, святлейшай шапкай і бледнымі або белымі лускавінкамі на ножцы.
Leccinum melaneum
Асноўныя адрозненні
Падбярозавік чорна-карычневы (Leccinum melaneum) характарызуецца вельмі цёмнай або амаль чорнай шапкай, больш каржакаватым і масіўным выглядам і больш шчыльнай мякаццю. Статус гэтага таксона застаецца дыскусійным (часам разглядаецца як разнавіднасць або асобны від).
Leccinum duriusculum
Асноўныя адрозненні
Падасінавік цвердаваты (Leccinum duriusculum) расце пад таполямі (перш за ўсё пад асінай). Яго мякаць пасля пашкоджання чырванее, а затым шарэе альбо чарнее, а каля асновы ножкі з'яўляецца зеленаватае адценне.
Leccinum pseudoscabrum
Асноўныя адрозненні
Падбярозавік грабавы (Leccinum pseudoscabrum) адрозніваецца мікарызнай сувяззю з грабам і пацямненнем пашкоджанай мякаці.
Leccinum versipelle
Асноўныя адрозненні
Падасінавік жоўта-буры (Leccinum versipelle) у карычневай каляровай форме часам блытаюць з падбярозавікам звычайным, аднак яго мякаць на разрэзе выразна шарэе і цямнее.
FAQ
Якія рысы вылучаюць ножку падбярозавіка звычайнага?
Ножка стройная, цыліндрычная, белаватая і густа пакрытая дробнымі лускавінкамі афарбоўкі ад шэрай праз бурую да чарнаватай. Па меры росту пладовага цела яна становіцца валакністай і адраўнелай.
Ці з'яўляецца падбярозавік звычайны ядомым грыбом?
Так, гэта шырока распаўсюджаны і смачны ядомы грыб. Асабліва цэняцца маладыя шапкі. Ножкі старэйшых экзэмпляраў бываюць цвёрдымі і валакністымі, таму іх часта выкідваюць.
Ці можна пераблытаць падбярозавік звычайны з атрутным грыбом?
У Польшчы няма смяротна атрутных трубчастых грыбоў такога выгляду. Недасведчаныя грыбнікі могуць пераблытаць яго з гарчаком жоўцевым, які мае горкі смак і поры, што з узростам ружавеюць.
У якіх месяцах сустракаецца падбярозавік звычайны?
Пладовыя целы з'яўляюцца звычайна з лета да позняй восені, часцей за ўсё з чэрвеня або ліпеня да канца кастрычніка, з пікам плоданашэння ў верасні пасля цёплых і вільготных дзён.
Чым адрозніваецца падбярозавік звычайны ад падасінавіка чырвонага?
Падасінавік чырвоны мае аранжавую шапку, мякаць, якая цямнее да шэра-чорнай, і блакітнаватую каля асновы ножкі. У падбярозавіка шапка шэра-карычневая, а мякаць можа слаба ружавець, бурэць або шарэць.
Пад якімі дрэвамі расце падбярозавік звычайны?
Гэты грыб утварае мікарызу выключна з бярозамі. Яго можна сустрэць у бярозавых і мяшаных лясах, на ўскрайках гаёў і на тарфянішчах — усюды, дзе растуць бярозы.
Якія часткі пладовага цела лепш за ўсё падыходзяць для перапрацоўкі?
Найбольш цэняцца шапкі маладых пладовых цел са шчыльнай структурай. Ножкі старэйшых грыбоў становяцца лыкаватымі, таму іх звычайна сушаць і мелюць на прыправу або проста выкідваюць.
Ці змяняе мякаць падбярозавіка звычайнага колер пасля разрэзвання?
Мякаць тыповага падбярозавіка белая альбо крэмавая і ў цэлым не змяняе колеру пасля пашкоджання і не сінее, у адрозненне ад некаторых іншых відаў падбярозавікаў (напрыклад, падбярозавіка рознакаляровага).
Аматар
Ніз шапкі
- Даўжыня трубачак
- Даўжыня трубачак: 8–19 mm.
Назвы і гісторыя
- Obowiązująca nazwa krajowa
- koźlarz babka
- Obowiązująca nazwa taksonomiczna
- Leccinum scabrum
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: карычневы.
- Адценне споравага адбітка
- Адценне споравага адбітка: аліўкава-карычневы. Адценне споравага адбітка: Аліўкава-карычняватая.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: верацёнападобны. Форма споры: верацёнападобны. Форма споры: падоўжана-эліпсоідны. Форма споры: амаль верацёнападобны.
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 13–22 µm, шырыня 4–6,5 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
- Грануламетрычны склад глебы
- Грануламетрычны склад глебы: пясчаны.
- Вільготнасць глебы
- Вільготнасць глебы: сухі.
Вільготнасць глебы: Вільготная. - Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Betula (агульны пералік партнёраў).
Гісторыя і культура
Від быў навукова апісаны Жанам-Батыстам Бюльярам як Boletus scaber, а ў 1821 годзе Сэмюэл Фрэдэрык Грэй перанёс яго ў род Leccinum, утварыўшы дзеючую камбінацыю Leccinum scabrum. У польскай народнай традыцыі і рэгіянальнай наменклатуры гэты грыб атрымаў шэраг ужытковых назваў, такіх як babka, koźlak, brzeziak ці podbrzeźniak, якія непасрэдна паказваюць на яго сімбіёз з бярозай.
У этнамікалагічных даследаваннях падкрэсліваецца моцнае становішча падбярозавікаў у культуры збіральніцтва Цэнтральнай і Усходняй Еўропы. Аднак гэтыя звесткі застаюцца апісаннем больш шырокай групы: у свядомасці грыбнікоў падбярозавікі функцыянуюць як зборны народны таксон (Leccinum spp.), у межах якога не адрозніваюць асобныя біялагічныя віды з карычневымі капялюшыкамі. Такім чынам, усе традыцыйныя павер'і, даўнія звычаі збору і назвы адносяцца на практыцы да ўсёй групы звязаных з бярозамі падбярозавікаў, а не выключна да вузка разуменага Leccinum scabrum у сэнсе сучаснай таксанаміі.
Ядомасць і бяспека
Падбярозавік звычайны (Leccinum scabrum) з'яўляецца агульнапрызнаным ядомым грыбам з мяккім смакам і тонкім лясным водарам. У ежу збіраюць перш за ўсё маладыя, шчыльныя і пругкія пладовыя целы. Спелыя і старэйшыя экзэмпляры хутка вянуць, становяцца губчатымі і схільнымі да насычэння вадой, а мякаць у іх ножках дранцвее, становіцца цвёрдай і кудзелістай, з-за чаго яны губляюць кулінарную каштоўнасць.
Гэты від безумоўна патрабуе тэрмічнай апрацоўкі перад ужываннем і не можа ўжывацца ў сырым выглядзе. Да асноўных спосабаў прыгатавання належаць варэнне, тушэнне або смажанне. Падчас варэння і цеплавой апрацоўкі мякаць падбярозавіка звычайнага натуральным чынам цямнее, набываючы шэраваты або цёмна-карычневы колер, што з'яўляецца тыповай рысай для гэтага грыба. У кулінарных мэтах варта выкарыстоўваць толькі здаровыя, свежыя і непашкоджаныя экзэмпляры, адкідаючы пераспелыя, празмерна размяклыя пладовыя целы або пладовыя целы са слядамі пашкоджання насякомымі.
Месцапражыванне і сустракальнасць
Падбярозавік звычайны з'яўляецца мікарызным грыбам, цесна звязаным з бярозамі (Betula spp.), асабліва з бярозай павіслай і пушыстай. Сустракаецца ў лісцевых і мяшаных лясах з удзелам гэтага дрэва, у маладняках, чыстых бярэзніках, а таксама на тарфяніках, верасоўніках і вільготных лясных палянах. Аддае перавагу кіслым, пясчаным і пясчана-гліністым глебам.
Геаграфічны арэал у пэўнай трактоўцы ахоплівае ўмераную і халодную зоны Еўропы, дзе гэты від з'яўляецца звычайным. У мікалагічнай літаратуры адзначалася таксама яго прысутнасць у іншых рэгіёнах Паўночнага паўшар'я, аднак сучасныя малекулярныя даследаванні патрабуюць асцярожнасці ў абагульненнях адносна арэала. У навейшых публікацыях матэрыял з Азіі падаецца з агаворкай як Leccinum cf. scabrum праз таксанамічныя сумневы і неабходнасць рэвізіі вызначэнняў.
Ва ўмовах Цэнтральнай Еўропы, у тым ліку ў Польшчы, сезон плоданашэння доўжыцца ад ранняга лета да позняй восені. Згодна з польскімі феналагічнымі дадзенымі, пладовыя целы з'яўляюцца з чэрвеня па лістапад (VI–XI), у залежнасці ад ападкаў і тэмпературы глебы.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Źródło bez opisu bibliograficznego · Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Źródło bez opisu bibliograficznego · Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Leccinum scabrum
Leccinum scabrum (Bull.) Gray należy do rodziny Boletaceae w rzędzie Boletales (podklasa Agaricomycetidae, klasa Agaricomycetes, typ Basidiomycota, królestwo Fungi). Połączenie Graya zostało opublikowane w Natural Arrangement of British Plants 1:647 (1821). Bazionimem jest Boletus scaber Bull. z dzieła Herbier de la France 3, tablica 132. Rejestr Species Fungorum podaje datę 1783 [1782–83], natomiast rewizja taksonomiczna z 2005 r. wskazuje 1782 r.; rozbieżność ta pozostaje odnotowaną różnicą bibliograficzną.
Wśród historycznych ujęć i kombinacji taksonomicznych znajdują się m.in. Suillus scaber, Krombholzia scabra, Gyroporus scaber, Ceriomyces scaber, Tubiporus scaber, Krombholziella scabra oraz Trachypus scaber. W piśmiennictwie mykologicznym opisano również liczne odmiany i formy pod odrębnymi nazwiskami autorów i datami. Przynależność do dzisiejszej synonimii nie oznacza jednak tożsamego zakresu każdego dawnego ujęcia taksonomicznego.
Межы таксона і абмежаванні вызначэння
W literaturze odnotowano angielską nazwę zwyczajową Birch Bolete (bez przypisania do konkretnego obszaru anglojęzycznego). Niemiecka nazwa Gemeiner Birkenpilz nie ma bezpośredniego potwierdzenia w wykorzystanych źródłach.
Den Bakker i Noordeloos w rewizji z 2005 r. przyjęli szerokie ujęcie Leccinum scabrum, włączając do niego taksony opisywane pod nazwami roseofractum, avellaneum, rigidipes oraz subcinnamomeum. W tym ujęciu różowienie lub czerwienienie miąższu mieści się w naturalnej zmienności gatunku. Leccinum melaneum został w tej pracy potraktowany jako odrębny takson, a hipoteza o jego mieszańcowym pochodzeniu pozostaje nierozstrzygnięta (czeska literatura ujmuje go jako odmianę lub osobny gatunek). Z kolei Leccinum rotundifoliae w rewizji z 2005 r. uznano za odrębny takson, podczas gdy Species Fungorum włącza tę nazwę do synonimii L. scabrum.
Takson Leccinum oxydabile jest obecnie włączany do synonimii Leccinum scabrum w bazie Species Fungorum, choć inne bazy danych i rejestry mykologiczne (takie jak Checklist, GBIF czy MycoBank) bywają przywoływane w literaturze w kontekście odmiennych przypisań taksonomicznych. Cech dawnych ujęć tego taksonu nie należy bezkrytycznie przenosić na współcześnie definiowany gatunek.
Brak sinienia miąższu nie jest cechą wystarczającą do bezwzględnego oznaczenia gatunku, gdyż nietypowe owocniki innych gatunków (np. Leccinum snellii czy L. schistophilum) mogą nie wykazywać typowej dla siebie reakcji barwnej. Oznaczenie wymaga uwzględnienia budowy mikroskopowej skórki, zarodników i kaulocystyd. Reakcje chemiczne miąższu (brak reakcji lub słabe czerwienienie z formaliną oraz próby z FeSO4) mają zmienny przebieg zależny od wieku i wilgotności owocnika, przez co nie stanowią jednoznacznych kryteriów kluczowych.
- Zakres ujęcia taksonomicznego
Leccinum scabrum (Bull.) Gray; each literature report retains its own explicitly stated source concept. Den Bakker and Noordeloos2005 pp.547–550 are the wider concept including L.roseofractum, L.avellaneum and L.rigidipes. Gargano material is SAF545. No assignment of neighbouring species descriptions or subsection Scabra general characters.
[9] [10]
Экалогія і распаўсюджванне
- Частата знаходак
- Польшча: Частата знаходак: звычайны. [10]
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
Каўлацыстыды
Гіменіяльныя цыстыды
- Даўжыня гіменіяльнай цыстыды
- Даўжыня гіменіяльнай цыстыды: 30–50 µm. [4]
- Форма гіменіяльнай цыстыды
- Форма гіменіяльнай цыстыды: ад верацёнападобнай да бутэлькападобнай. [4]
Форма гіменіяльнай цыстыды: цыліндрычны. [4]
Форма гіменіяльнай цыстыды: булавападобны. [4]
Форма гіменіяльнай цыстыды: Бутэлькападобная. [4] - Шырыня гіменіяльнай цыстыды
- Шырыня гіменіяльнай цыстыды: 5,5–7,5 µm. [4]
Скурка шапкі
- Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: 3,5–8 µm. [4]
Шырыня элементаў скуркі капялюшыка: 8–17 µm. [4]
Шырыня элементаў скуркі капялюшыка: 7,5–16 µm. [4] - Інкрустацыя гіф скуркі
- Інкрустацыя гіф скуркі: наяўны. [4]
- Колер пігменту скуркі
- Колер пігменту скуркі: карычневы. [4]
- Будова скуркі капялюшыка
- Будова скуркі капялюшыка: куціс. [4]
- Форма канцавой клеткі скуркі шапкі
- Форма канцавой клеткі скуркі шапкі: канічны. [4]
Споры
- Змесціва споры
- Змесціва споры: з вакуолямі. [8]
- Кроплі ўнутры споры
- Кроплі ўнутры споры: наяўны. [8]
- Даўжыня споры
- Даўжыня споры: 13–20 µm. [10]
Даўжыня споры: 13,5–22 µm. [4]
Даўжыня споры: 13–21 µm. [8]
Даўжыня споры: 13–20 µm. [5] - Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 2,5–3,5. [4]
- Форма споры
- Форма споры: верацёнападобны. [4]
Форма споры: верацёнападобны. [10]
Форма споры: падоўжана-эліпсоідны. [8]
Форма споры: амаль верацёнападобны. [8] - Паглыбленне над рубчыкам базідыяспоры
- Паглыбленне над рубчыкам базідыяспоры: наяўны. [4]
- Таўшчыня сценкі споры
- Таўшчыня сценкі споры: танкасценны. [8]
Матэрыял і метады даследаванняў
Metody i zapisy źródłowe — Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki; Długość kaulocystyd; Szerokość kaulocystyd; Długość cystydy hymenialnej; Szerokość cystydy hymenialnej; Szerokość elementów skórki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [4]
Kształt kaulocystyd; Kształt cystydy hymenialnej; Inkrustacja strzępek skórki; Barwa pigmentu skórki; Organizacja skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.” [4]
Metody i zapisy źródłowe — Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.
Identyfikacja kropli: nierozstrzygnięta.
Zawartość zarodnika; Krople wewnątrz zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika — zapis źródłowy: „Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [8]
Metody i zapisy źródłowe — Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [10]
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.” [10]
Metody i zapisy źródłowe — Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [5]
Праверка пашырэння — абсяг і абмежаванні
Materiał: Pierwotna kolekcja autora atlasu z Kotliny Kłodzkiej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[10]Аб’ём апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Прававая аснова і абсяг ацэнкі
Правілы для лакацыі: Польшча
Аснова інфармацыі аб ахове
Koźlarz babka nie jest objęty w Polsce gatunkową ochroną ścisłą ani częściową.
[6]Аснова інфармацыі аб гандлі
Koźlarz babka (wszystkie odmiany) figuruje w polskim wykazie grzybów dopuszczonych do obrotu i produkcji przetworów grzybowych, poz.15.
[7]Найважнейшыя рэчывы і іх дзеянне
Analizę biochemiczną wysuszonej i zmielonej próby SAF545 przeprowadziło laboratorium EcamRicert (raport 20LA09820 z 28 lipca 2020 r.) w trzech powtórzeniach technicznych, metodami analitycznymi według Baldini i in. (1996), z przelicznikiem białka N × 6,25 i oszacowaniem niepewności według UNI ISO 3534-1:2000.
Skład podstawowy i wartość energetyczna suchej zmielonej próby (wartości na 100 g):
- Sucha masa: 91,29 ± 0,38 g
- Wilgotność: 8,71 ± 0,38 g
- Białko ogólne (N × 6,25): 31,7 ± 1,3 g
- Tłuszcz ogólny: 3,64 ± 0,22 g
- Węglowodany: 31,57 ± 2,44 g
- Błonnik pokarmowy (wysokocząsteczkowy): 18,9 ± 2,0 g
- Popiół: 5,48 ± 0,30 g
- Wartość energetyczna: 324 ± 5 kcal (1361 ± 21 kJ).
Zawartość cukrów w suchej zmielonej próbie (g/100 g):
- Glukoza: 2,63 ± 0,41
- Fruktoza: 0,334 ± 0,053
- Laktoza: < 0,010
- Sacharoza: < 0,010
- Maltoza: < 0,010
- Cukry ogółem: 2,964 ± 0,413.
Zawartość witamin (%) i składników mineralnych (mg/kg) w suchej zmielonej próbie:
- Witamina D3: < 0,00002%
- Witamina B1: < 0,00001%
- Witamina B2: 0,0016 ± 0,0002%
- Witamina B3: 0,0146 ± 0,0015%
- Witamina B5: 0,0019 ± 0,0002%
- Witamina B6: < 0,00003%
- Witamina B8: < 0,00003%
- Witamina B12: < 0,000005%
- Sód (Na): 0,028 ± 0,006 mg/kg
- Potas (K): 2,25 ± 0,53 mg/kg
- Żelazo (Fe): < 0,003 mg/kg
- Wapń (Ca): < 0,025 mg/kg
- Fosfor (P): 3710,0 ± 670,0 mg/kg
- Magnez (Mg): 590,0 ± 130,0 mg/kg
- Cynk (Zn): 71,0 ± 13,0 mg/kg
- Miedź (Cu): 16,8 ± 3,2 mg/kg
- Selen (Se): 7,4 ± 1,8 mg/kg
- Mangan (Mn): 6,6 ± 1,3 mg/kg
- Nikiel (Ni): 1,01 ± 0,18 mg/kg
- Chrom (Cr): 0,84 ± 0,16 mg/kg
- Siarka całkowita (S): 8200,0 ± 1,50 mg/kg.
Profil kwasów tłuszczowych w suchej zmielonej próbie (g/100 g):
- Kwas masłowy (4:0): < 0,010
- Kwas kapronowy (6:0): < 0,010
- Kwas enantowy (7:0): < 0,010
- Kwas kaprylowy (8:0): < 0,010
- Kwas kaprynowy (10:0): < 0,010
- Kwas kaproleinowy (10:1): < 0,010
- Kwas laurynowy (12:0): < 0,010
- Kwas lauroleinowy (12:1 n-3): < 0,010
- Kwas izomirystynowy (14:0 iso): 0,0010
- Kwas mirystynowy (14:0): 0,0073 ± 0,0017
- 14:1 (suma): < 0,0010
- Kwas pentadekanowy (15:0): 0,0094 ± 0,0021
- 15:1 (suma): 0,0093 ± 0,0021
- Kwas sarcinowy (15:0 ante-iso): < 0,0010
- Kwas izopalmitynowy (16:0 iso): < 0,0010
- Kwas anteizopalmitynowy (16:0 ante-iso): < 0,0010
- Kwas palmitynowy (16:0): 0,372 ± 0,056
- 17:0 ante-iso: 0,0088 ± 0,0020
- Kwas margarynowy (17:0): 0,00366 ± 0,00100
- Kwas margarynowy (17:0 iso): < 0,0010
- 17:1 (suma): 0,0098 ± 0,0020
- Kwas palmitooleinowy (16:1 suma): 0,0224 ± 0,0048
- Kwas izostearynowy (18:0 iso): 0,0348 ± 0,0074
- Kwas anteizostearynowy (c-18:0 ante-iso): < 0,0010
- Kwas stearynowy (18:0): 0,075 ± 0,016
- Kwas oleinowy (18:1 suma): 1,05 ± 0,13
- 19:0: < 0,0010
- 19:0 ante-iso: < 0,0010
- 19:1 (suma): < 0,0010
- Kwas arachidowy (20:0): 0,0055 ± 0,0013
- Kwas izoarachidowy (20:0 iso): < 0,0010
- Kwas α-linolenowy (18:3 suma): 0,0085 ± 0,0017
- Kwas gadoleinowy (20:1 suma): 0,0145 ± 0,0031
- Sprzężony kwas linolowy (suma 18:2 CLA): < 0,0010
- Kwas heneikozanowy (21:0): < 0,0010
- Kwas stearydonowy (18:4 n-3): 0,0146 ± 0,0031
- Kwas behenowy (22:0): 0,0042 ± 0,0011
- 22:1: 0,00206 ± 0,00077
- Kwas lignocerynowy (24:0): 0,00231 ± 0,00080
- Wielonienasycone kwasy tłuszczowe >C20: 0,00183 ± 0,00074
- Kwasy tłuszczowe nasycone (SFA): 0,523 ± 0,059
- Kwasy tłuszczowe jednonienasycone (MUFA): 1,11 ± 0,12
- Kwasy tłuszczowe wielonienasycone (PUFA): 1,98 ± 0,23
- Stosunek kwasów PUFA/MUFA: 1,78 ± 0,29
- Stosunek kwasów PUFA/SFA: 3,79 ± 0,62.
Zawartość wolnych aminokwasów i związków pokrewnych w suchej zmielonej próbie (g/100 g):
- Kwas asparaginowy: 0,1124 ± 0,0082
- Kwas glutaminowy: 0,4318 ± 0,0313
- Alanina: 1,0600 ± 0,0769
- Arginina: 0,4556 ± 0,0331
- Asparagina: 0,1575 ± 0,0114
- Cystyna: < 0,0100
- Prolina: 0,1005 ± 0,0073
- Fenyloalanina: 0,0311 ± 0,0024
- Glicyna: 0,2679 ± 0,0194
- Glutamina: 0,9199 ± 0,0667
- Izoleucyna: 0,0222 ± 0,0017
- Histydyna: 0,1353 ± 0,0098
- Leucyna: 0,0300 ± 0,0023
- Lizyna: 0,2170 ± 0,0158
- Metionina: < 0,0100
- Ornityna: 0,2085 ± 0,0151
- Seryna: 0,3202 ± 0,0232
- Tyrozyna: 0,0538 ± 0,0040
- Treonina: 0,2762 ± 0,0200
- Walina: 0,1220 ± 0,0089
- Kwas γ-aminomasłowy (GABA): 0,3900 ± 0,0283
- Kwas α-aminomasłowy: < 0,0010
- Wolne aminokwasy ogółem: 5,31 ± 0,13.
W profilu lipidowym zmielonej próby wielonienasycone kwasy tłuszczowe (PUFA) stanowią 1,98 ± 0,23 g/100 g, jednonienasycone (MUFA) 1,11 ± 0,12 g/100 g, a nasycone (SFA) 0,523 ± 0,059 g/100 g, przy proporcjach PUFA/MUFA wynoszącej 1,78 ± 0,29 oraz PUFA/SFA równej 3,79 ± 0,62. Pula wolnych aminokwasów wynosi 5,31 ± 0,13 g/100 g, z istotnym udziałem alaniny, glutaminy oraz kwasu γ-aminomasłowego (GABA, 0,3900 ± 0,0283 g/100 g).
Dane analityczne badanej próby wykazują następujące poziomy wybranych mikroskładników: witamina D3 poniżej 0,00002%, żelazo poniżej 0,003 mg/kg, wapń poniżej 0,025 mg/kg, sód 0,028 ± 0,006 mg/kg, a potas 2,25 ± 0,53 mg/kg suchej masy, przy wyższych poziomach fosforu (3710,0 ± 670,0 mg/kg) i siarki całkowitej (8200,0 ± 1,50 mg/kg).
Średnice stref zahamowania wzrostu w próbie krążkowej wyniosły:
- Listeria monocytogenes ATCC 19114: MAE: 13,5 ± 0,2 mm; UAE: 12,0 ± 0,1 mm (różnica istotna statystycznie, P < 0,01)
- Staphylococcus aureus subsp. aureus ATCC 33862: MAE: 12,5 ± 0,1 mm; UAE: 12,5 ± 0,1 mm
- Salmonella enterica subsp. enterica ATCC 13076: MAE: 11,5 ± 0,2 mm; UAE: 11,0 ± 0,1 mm
- Escherichia coli ATCC 25922: MAE: 10,5 ± 0,2 mm; UAE: 10,0 ± 0,2 mm.
Stopień zahamowania wzrostu bakterii w teście mikrorozcieńczeń (kategorie autorów: brak: −; niskie ≤35%: +; umiarkowane >35–70%: ++; wysokie >70%: +++):
100 mg/mL
- L. monocytogenes: MAE 99,80% (+++); UAE 94,90% (+++)
- S. aureus: MAE 99,75% (+++); UAE 95,38% (+++)
- S. enterica: MAE 99,76% (+++); UAE 99,79% (+++)
- E. coli: MAE 99,83% (+++); UAE 97,97% (+++)
50 mg/mL
- L. monocytogenes: MAE 92,92% (+++); UAE 79,58% (+++)
- S. aureus: MAE 61,93% (++); UAE 66,43% (++)
- S. enterica: MAE 81,77% (+++); UAE 89,94% (+++)
- E. coli: MAE 93,40% (+++); UAE 80,07% (+++)
25 mg/mL
- L. monocytogenes: MAE 74,11% (+++); UAE 57,60% (++)
- S. aureus: MAE 40,82% (++); UAE 46,76% (++)
- S. enterica: MAE 46,65% (++); UAE 67,62% (++)
- E. coli: MAE 75,51% (+++); UAE 66,67% (++)
12,5 mg/mL
- L. monocytogenes: MAE 39,15% (++); UAE 31,08% (+)
- S. aureus: MAE 25,04% (+); UAE 20,75% (+)
- S. enterica: MAE 55,39% (++); UAE 43,44% (++)
- E. coli: MAE 51,32% (++); UAE 51,94% (++)
6,25 mg/mL
- L. monocytogenes: MAE 30,12% (+); UAE 18,33% (+)
- S. aureus: MAE 24,32% (+); UAE 22,30% (+)
- S. enterica: MAE 43,22% (++); UAE 42,82% (++)
- E. coli: MAE 46,73% (++); UAE 39,26% (++)
3,125 mg/mL
- L. monocytogenes: MAE 23,97% (+); UAE 15,58% (+)
- S. aureus: MAE 19,03% (+); UAE 16,33% (+)
- S. enterica: MAE 37,26% (++); UAE 28,90% (+)
- E. coli: MAE 27,61% (+); UAE 19,13% (+)
1,5625 mg/mL
- L. monocytogenes: MAE 17,50% (+); UAE 12,13% (+)
- S. aureus: MAE 6,38% (+); UAE 10,63% (+)
- S. enterica: MAE 18,68% (+); UAE 20,70% (+)
- E. coli: MAE 23,18% (+); UAE 20,84% (+)
0,78125 mg/mL
- L. monocytogenes: MAE 14,19% (+); UAE 11,59% (+)
- S. aureus: MAE 4,13% (+); UAE 10,84% (+)
- S. enterica: MAE 5,07% (+); UAE 7,10% (+)
- E. coli: MAE 0,00% (−); UAE 10,52% (+).
W teście mikrorozcieńczeń oba ekstrakty w stężeniu 100 mg/mL silnie hamowały wzrost wszystkich czterech badanych szczepów (>70%). Przy stężeniu 50 mg/mL ekstrakt UAE hamował wzrost E. coli na wysokim poziomie 80,07%. Przy stężeniu 6,25 mg/mL ekstrakt UAE hamował wzrost S. enterica na poziomie umiarkowanym (42,82%). Przy najniższym testowanym stężeniu 0,78125 mg/mL ekstrakt MAE nie wykazywał hamowania wzrostu E. coli (0,00%), podczas gdy pozostałe warianty wykazywały niskie wartości hamowania.
Badania aktywności biologicznej ekstraktów wodnych opublikowano w czasopiśmie Mycology (online 2024, wydanie drukowane 16(1), 2025, s. 402–412; erratum z 2025 r. pod DOI 10.1080/21501203.2025.2461915). Przedstawione wyniki mają charakter wyłącznie laboratoryjnych testów in vitro.
Месцапражыванне і сустракальнасць
Асяроддзе, рэгіён і сезон
Koźlarz babka tworzy ektomikoryzę wyłącznie z brzozami (Betula). Wyrasta na ziemi, pojedynczo, w małych grupach lub gromadnie, w lasach, zaroślach, a także poza lasem – w parkach, ogrodach i na trawnikach pod brzozami. Preferuje gleby piaszczyste, suche do umiarkowanie wilgotnych, o odczynie słabo kwaśnym, pojawiając się m.in. w ubogich murawach z kostrzewą czerwoną (Festuca rubra) i śmiałkiem pogniecionym (Deschampsia flexuosa).
W Czechach koźlarz babka jest bardzo pospolity i występuje od nizin po tereny górskie w okresie od czerwca do listopada (udokumentowane znaleziska pochodzą m.in. z kraju środkowoczeskiego – 6 X 2024, pilzneńskiego – 18 VIII 2023, zlińskiego – 28 IX 2018 i Wysoczyzny – 14 IX 2017).
Gatunek jest szeroko rozprzestrzeniony w Europie (bardzo pospolity m.in. w Holandii) i wykazuje prawdopodobny zasięg okołobiegunowy; materiały zielnikowe pochodzą m.in. z Holandii, Finlandii oraz prowincji Ontario w Kanadzie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Крыніцы |
|---|---|---|---|
| Польшча | Клодзкая катлавіна | VI–XI |
|
Матэрыялы
Гербарныя калекцыі
- 44
Нідэрланды; Drenthe, Emmen; 1999-10-02; H.C. den Bakker
[2]- 50
Нідэрланды; Drenthe, Nieuw Amsterdam; 1999-10-04; H.C. den Bakker
[2]- 54
Нідэрланды; Drenthe, Borger, vicinity of cottage park Land van Bartje; 1999-10-05; H.C. den Bakker
[2]- 01-009
Нідэрланды; Drenthe, Gieten, Boekweitveentje; 2001; R. Enzlin
[2]- 48
Нідэрланды; Drenthe, Hoogeveen; leg.B.de Vries; 1999-10-03; H.C. den Bakker
[2]- 62
Нідэрланды; Noord-Holland, Amsterdamse Waterleiding Duinen, Eiland van Rolvers; 1999-10-23; H.C. den Bakker
[2]- 58
Нідэрланды; Zuid-Holland, Wassenaar, Meijendel; 1999-10-17; H.C. den Bakker
[2]- 42
Нідэрланды; Zuid-Holland, Voorschoten; C.Bas; 1999-09-30; H.C. den Bakker
[2]- 124
Нідэрланды; Utrecht, Zeist, Soesterberg; 2000-10-06; H.C. den Bakker
[2]- 1+2 (L), designated epitype
Францыя; Guyancourt, along N12, vicinity of Versailles; 2001-09-27; J. van Brummelen
[2]- Збор
Францыя; Orne, Foret de Belleme; 2001-09-28; Van Brummelen
[2]- 95
Нарвегія; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 91
Нарвегія; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 87
Нарвегія; Sogn og Fjordane, Sogndalsfjøra; IX 2000; H.C. den Bakker
[2]- 239
Вялікабрытанія; Scotland, Inverness-shire, Aberarder Forest; 2001-09-13; H.C. den Bakker
[2]- 231
Вялікабрытанія; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 237
Вялікабрытанія; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 4399 (E), holotype L.rigidipes
Вялікабрытанія; Scotland, Inverness-shire, Abernethy Forest; 1972-08-31; P. Orton
[2]- 4944 (E), holotype L.roseofractum
Вялікабрытанія; Scotland, Ross & Cromarty, Loch Maree; R. Watling
[2]- 22
Швецыя; Jämtland, Borgsjö; 1999-08-24; H.C. den Bakker
[2]- 80
Швецыя; Åre; 2000-09-04; H.C. den Bakker
[2]- 2003076
Вялікабрытанія; Wales, South Glamorgan, Merthyr-mawr sand dunes; A. Hills
[2]- SAF545
Польшча; Białowieża forest, Podlaskie; literal published location, not geocoded; summer; exact date/year unreported
[2]
Крыніцы
- leccinum_scabrum.source-collections
- src-bakker 2005
- src-cms-scabrum
- src-eli-protection-2014
- src-eli-trade-2026
- src-gargano 2024
- src-gbif-leccinum_scabrum
- src-snowarski-scabrum