
Съедобный

Укажите местоположение, чтобы увидеть данные для своего региона.
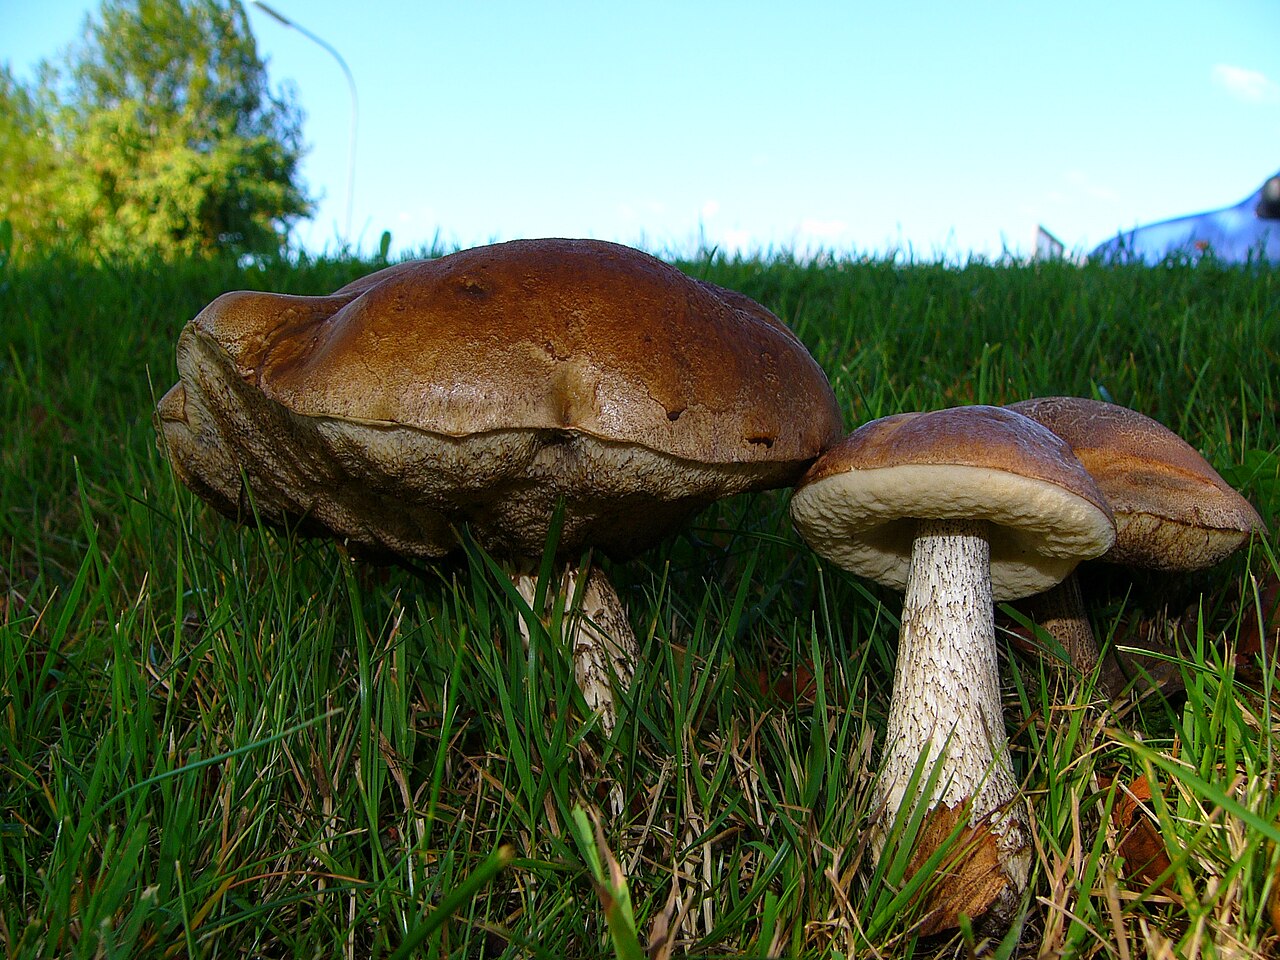
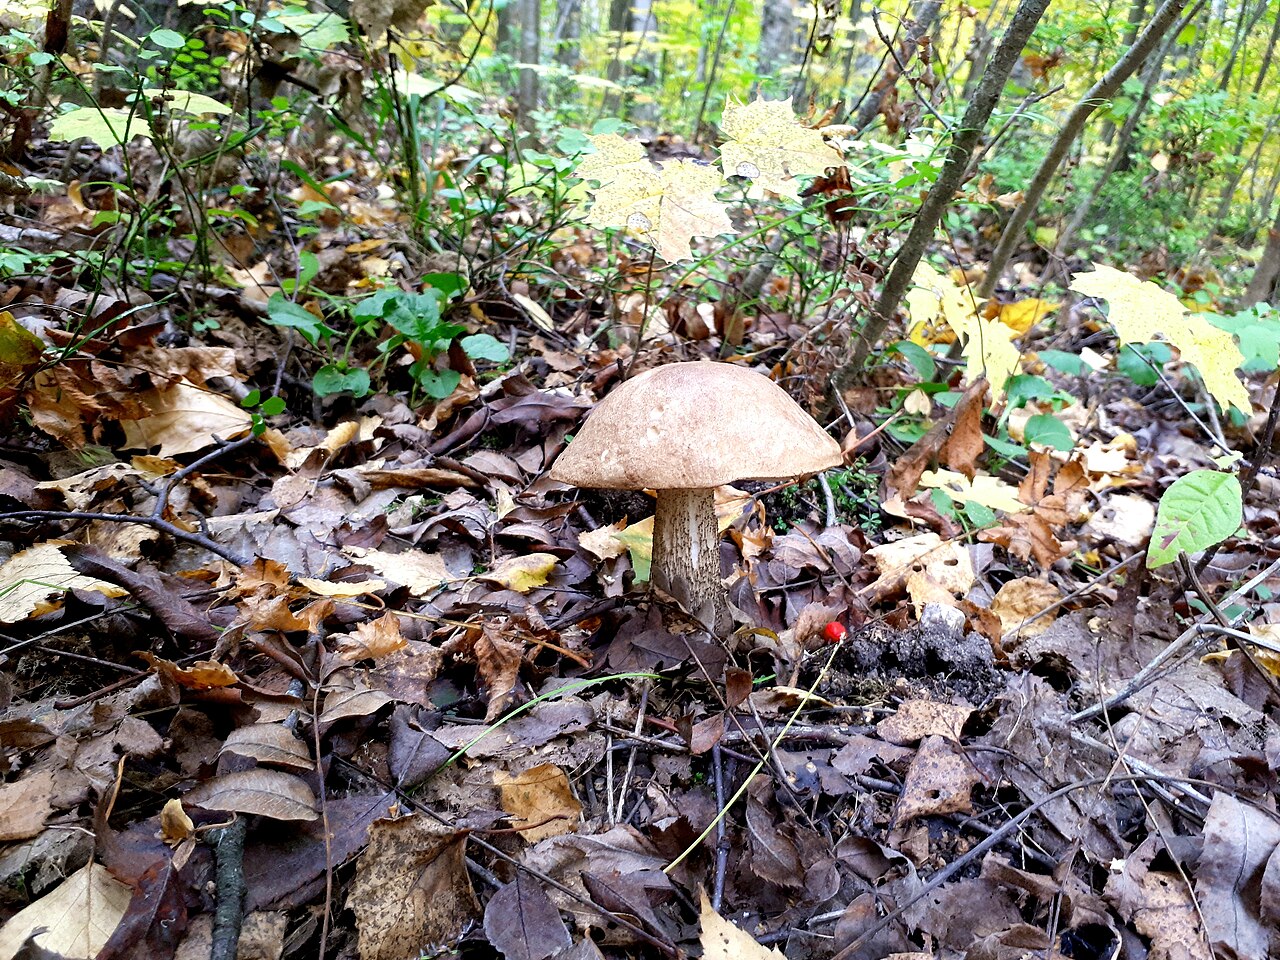
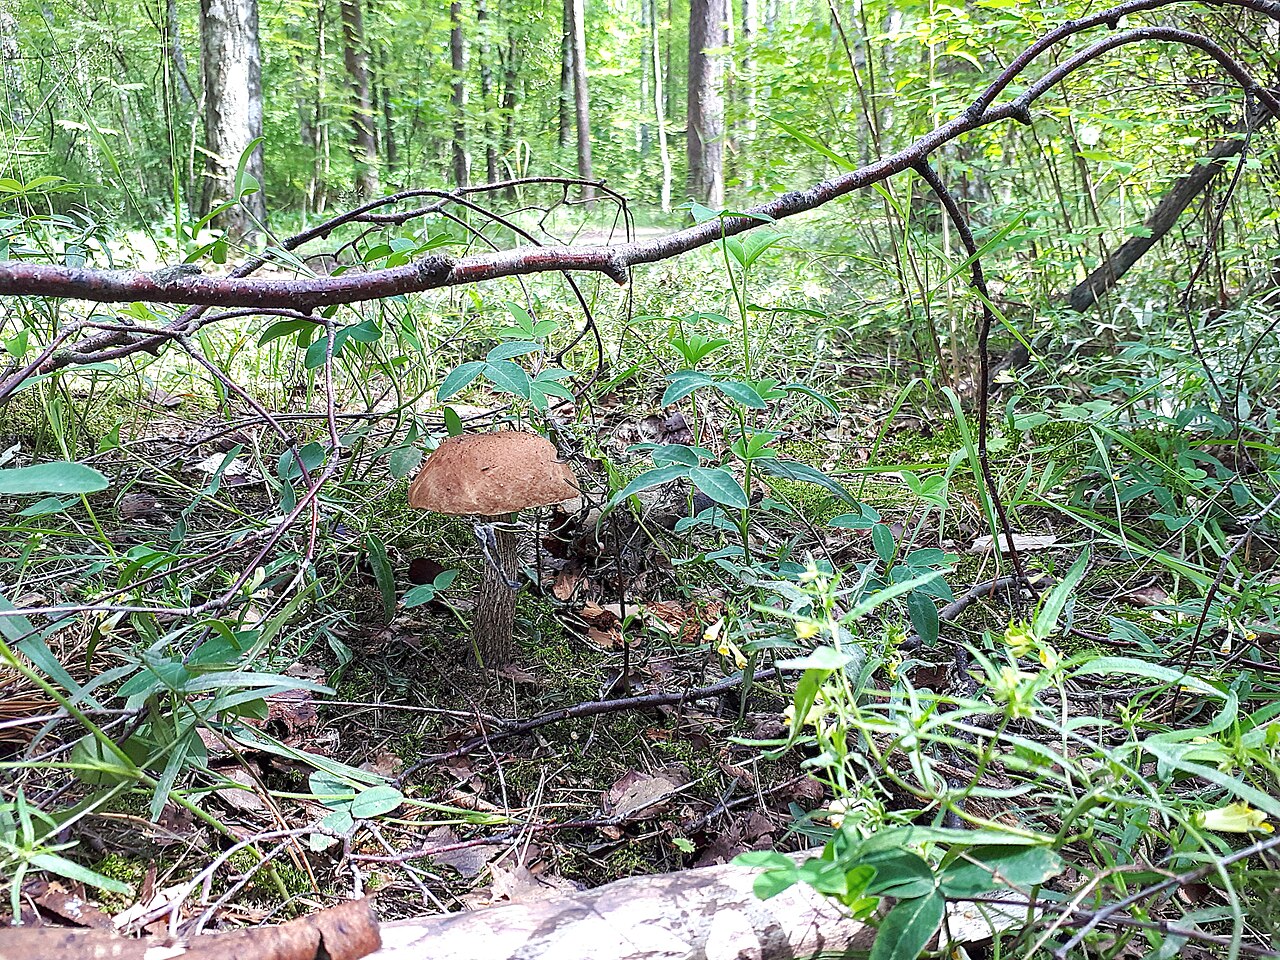
Подберёзовик обыкновенный (Leccinum scabrum) — обычный в Польше съедобный гриб, образующий микоризу с берёзами. Встречается в лиственных и смешанных лесах с лета по осень. Шляпка подушковидная, в оттенках серого, коричневого или охристого цвета, с сухой и гладкой поверхностью. Гименофор образован мелкими трубочками с беловатыми, сереющими с возрастом порами. Ножка стройная, светлая, покрытая тёмными чешуйками. Мякоть беловатая и в целом не меняет цвет на срезе. Ценится за нежный грибной вкус.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
Шляпка
- Форма шляпки
- у молодых плодовых тел: Форма шляпки: полушаровидный.
у зрелых плодовых тел: Форма шляпки: выпуклый.
у старых плодовых тел: Форма шляпки: плоский.
Форма шляпки: выпуклый. - Покров шляпки
- Покров шляпки: замшевая.
у молодых плодовых тел: Покров шляпки: войлочная.
у зрелых плодовых тел: Покров шляпки: голая.
у зрелых плодовых тел: Покров шляпки: чешуйчатая. - Клейкость и слизистость шляпки
- во влажном состоянии: Клейкость и слизистость шляпки: липкий.
во влажном состоянии: Клейкость и слизистость шляпки: слизистый. - Цвет шляпки
- Цвет шляпки: Тёмно-коричневый.
Цвет шляпки: жёлто-коричневой.
Цвет шляпки: коричневый.
Цвет шляпки: охристо-коричневый.
Цвет шляпки: чёрно-коричневый.
Цвет шляпки: серо-коричневый.
Цвет шляпки: орехово-коричневый.
Цвет шляпки: красно-коричневый. - Положение края
- Положение края: загнутый вниз.
Положение края: загнутый внутрь. - Выступ края шляпки за пределы гименофора
- Выступ края шляпки за пределы гименофора: не выступает за гименофор.
Выступ края шляпки за пределы гименофора: выступающий за пределы гименофора. - Диаметр шляпки
- Диаметр шляпки составляет 30–200 mm.
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: трубочки.
Трубочки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: приросший к ножке (трубочки).
- Ширина прирастания гименофора
- Ширина прирастания гименофора: широко приросший (трубочки).
- Цвет пор после повреждения
- Цвет пор после повреждения: коричневатый.
- Естественный цвет пор
- у зрелых плодовых тел: Естественный цвет пор: серо-коричневый.
у молодых плодовых тел: Естественный цвет пор: белый. - Естественный цвет трубочек
- у зрелых плодовых тел: Естественный цвет трубочек: серо-коричневый.
у молодых плодовых тел: Естественный цвет трубочек: беловатая.
Ножка и основание
- Форма ножки
- Форма ножки: цилиндрический.
Форма ножки: булавовидный. - Основание ножки
- Основание ножки: булавовидное.
- Цвет ножки
- Цвет ножки: беловатая.
Цвет ножки: Желтоватый.
Цвет ножки: светло-коричневый. - Рельеф поверхности ножки
- Рельеф поверхности ножки: бороздчатый.
- Покров поверхности ножки
- Покров поверхности ножки: чешуйчатая.
- Цвет орнаментации ножки
- Цвет орнаментации ножки: черноватый.
Цвет орнаментации ножки: сероватый.
Цвет орнаментации ножки: бледно-коричневый.
Цвет орнаментации ножки: чёрный.
Цвет орнаментации ножки: серо-коричневый. - Внутреннее строение ножки
- Внутреннее строение ножки: сплошной.
- Консистенция ножки
- Консистенция ножки: твёрдый.
Консистенция ножки: волокнистый. - Длина ножки
- Длина ножки: 50–200 mm.
- Диаметр ножки
- Диаметр ножки: 10–55 mm.
Мякоть
- Цвет мякоти
- Цвет мякоти: беловатая.
Цвет мякоти: белый.
Цвет мякоти: сероватый. - Плотность мякоти
- у молодых плодовых тел: Плотность мякоти: плотный.
у старых плодовых тел: Плотность мякоти: мягкий (мякоть шляпки). - Цвет мякоти после повреждения
- Цвет мякоти после повреждения: без изменения цвета.
Цвет мякоти после повреждения: без изменения цвета.
Цвет мякоти после повреждения: розоватый.
Цвет мякоти после повреждения: красноватый.
Где и когда растёт
- Местообитание
- Местообитание: парк.
Местообитание: сад. - Субстрат
- Субстрат: почва.
- Характер роста плодовых тел
- Характер роста плодовых тел: одиночно.
Характер роста плодовых тел: небольшими группами.
Характер роста плодовых тел: группами. - Частота встречаемости
- Частота встречаемости: обычный.
- Период плодоношения
- Плодовые тела появляются с июня по ноябрь.
- Ареал распространения
Съедобность и кулинария
- Съедобность
- Съедобный
Законодательство
- Охрана
- В Польше Leccinum scabrum не подлежит ни строгой, ни частичной охране видов.
- Торговля
- Leccinum scabrum (все разновидности) включён в польский перечень грибов, допущенных к обороту и производству грибной продукции, позиция 15.
С чем можно спутать
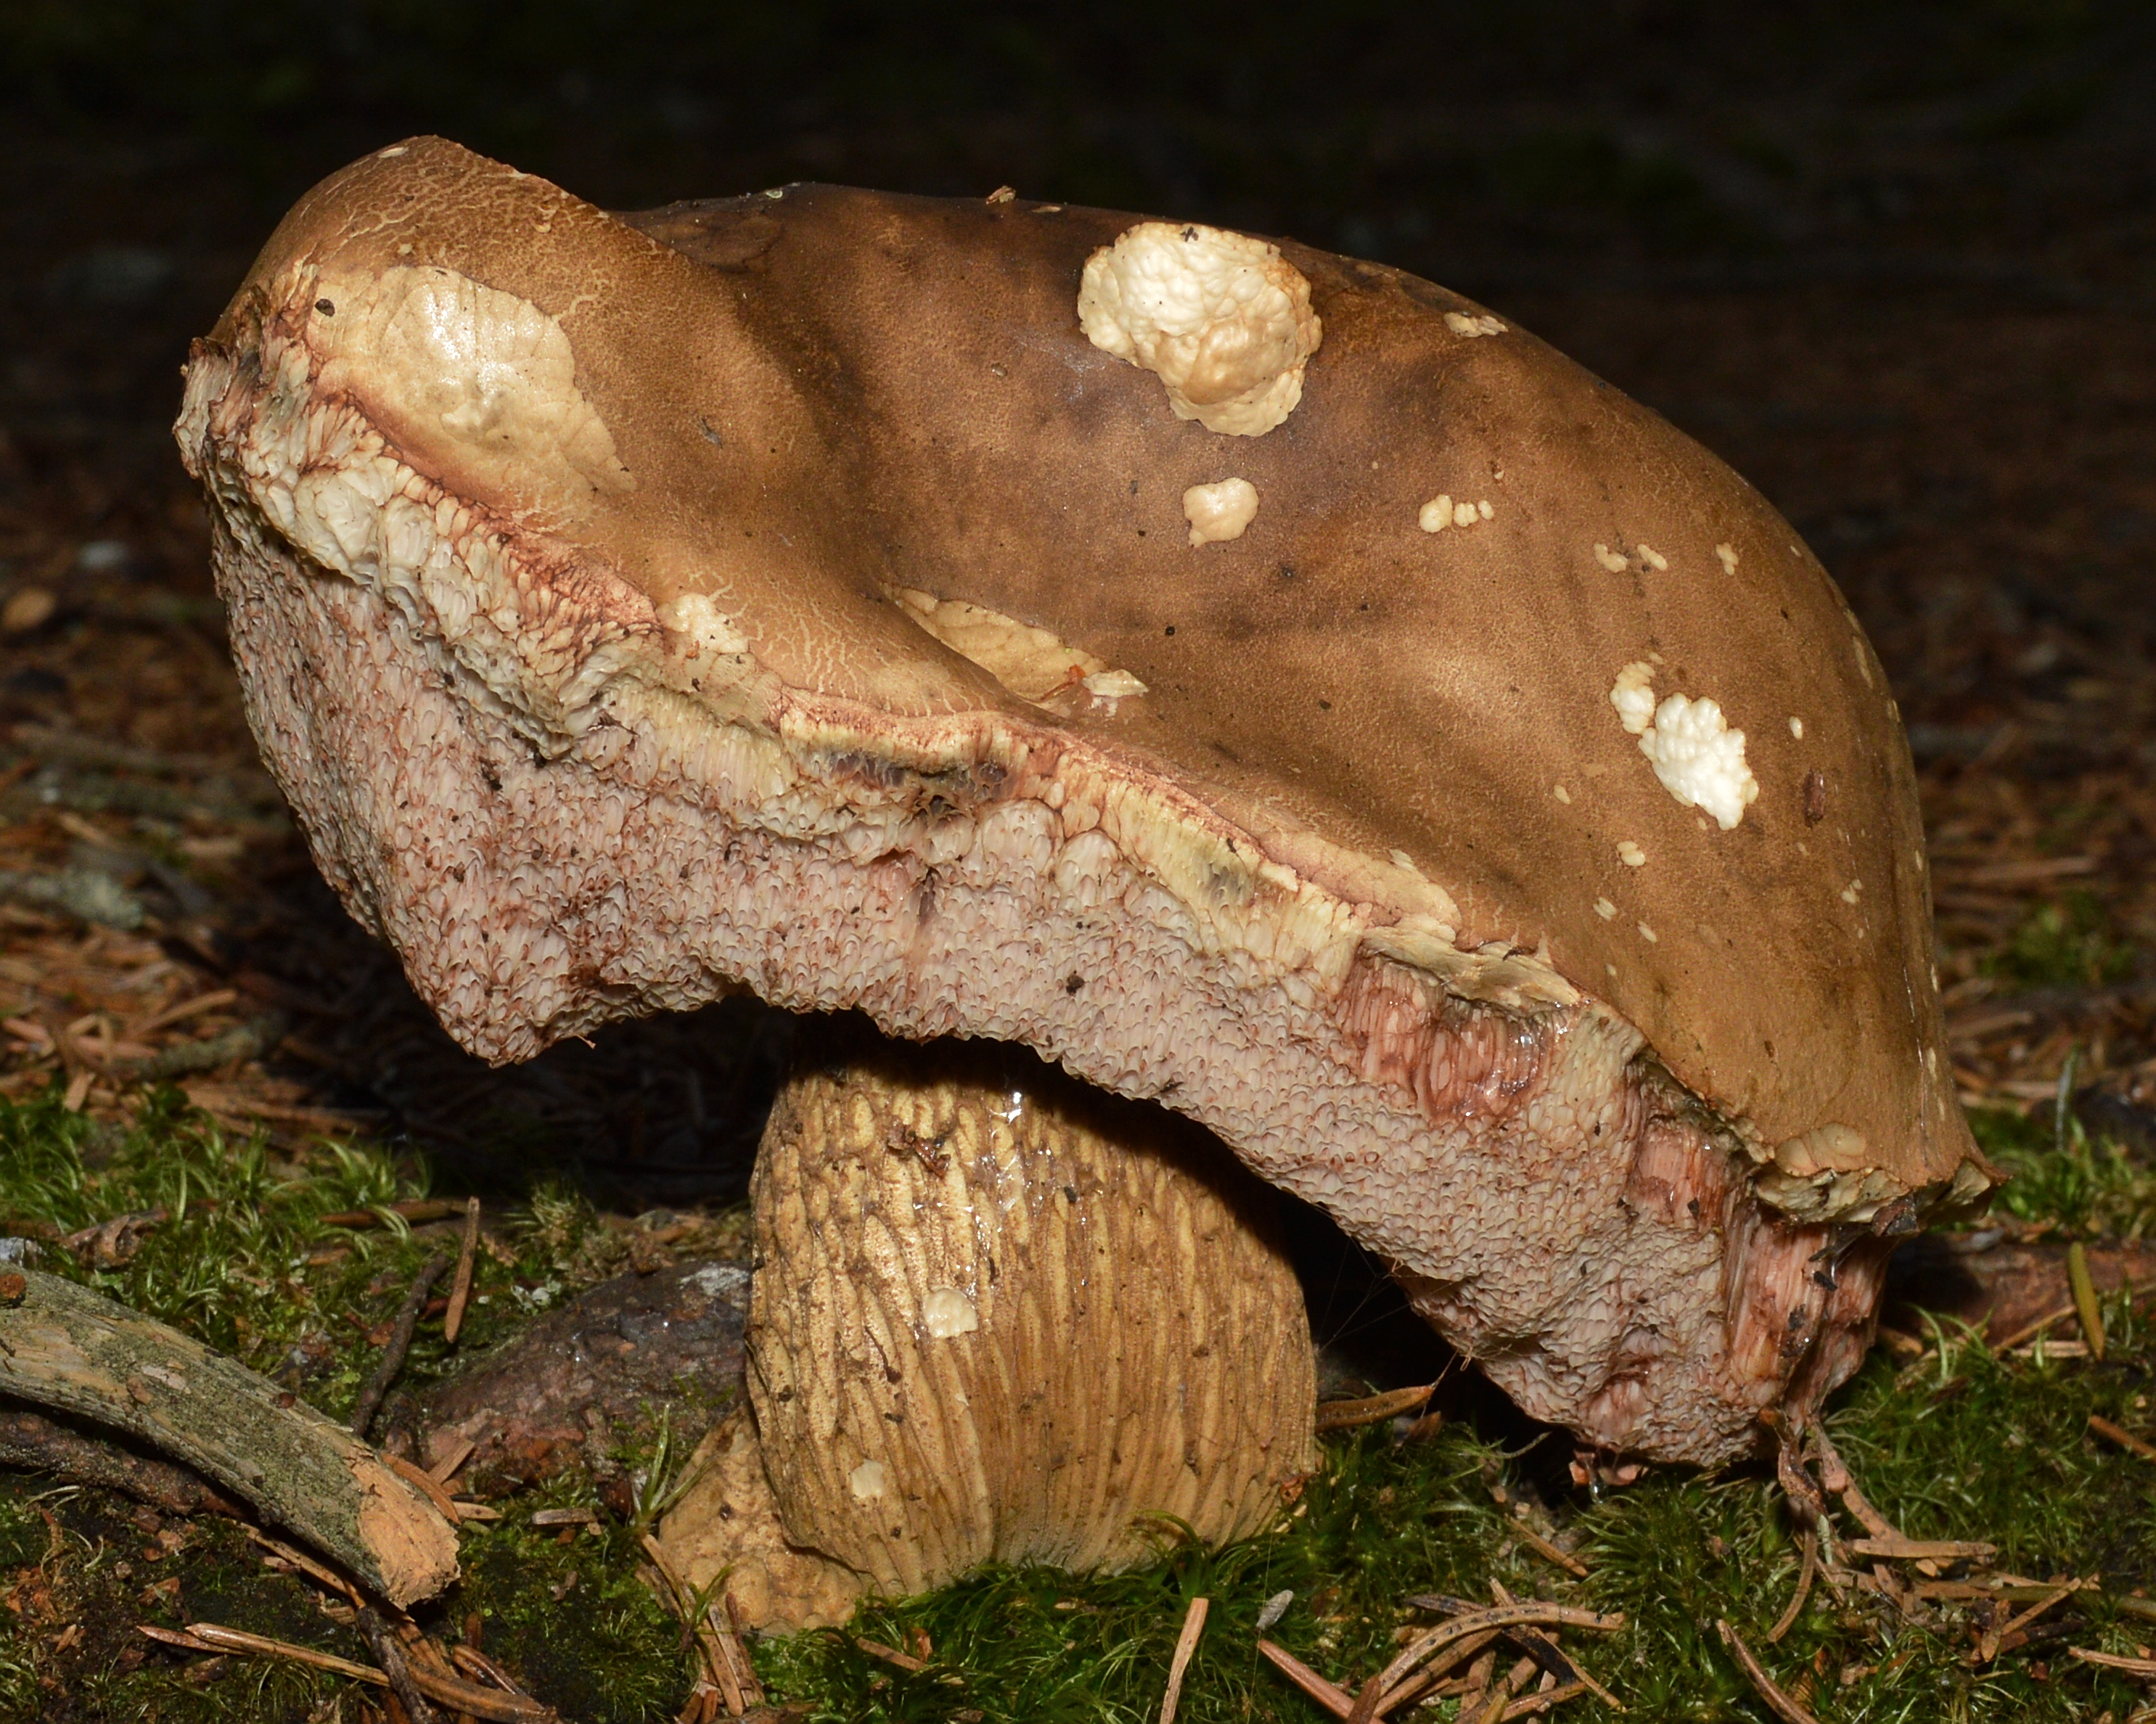
Tylopilus felleus
Основные различия
Подберёзовик обыкновенный (Leccinum scabrum) может напоминать старые, переросшие плодовые тела желчного гриба. Он отличается белыми трубочками без розового оттенка и ножкой, покрытой тёмными чешуйками, без желтоватого фона и без сеточки.
Leccinum variicolor
Основные различия
Подберёзовик разноцветный (Leccinum variicolor) также растёт под берёзами, обычно в более влажных местах. Отличается выраженным сине-зелёным изменением цвета мякоти у основания ножки, замедленным покраснением мякоти и часто пятнистой, от тёмно-серого до коричневого цвета шляпкой.
Leccinum cyaneobasileucum
Основные различия
Обабок синеющий (Leccinum cyaneobasileucum) отличается сине-зелёным изменением цвета основания ножки, как правило, более светлой шляпкой и бледными или белыми чешуйками на ножке.
Leccinum melaneum
Основные различия
Подберёзовик чёрно-бурый (Leccinum melaneum) характеризуется очень тёмной или почти чёрной шляпкой, более коренастым и массивным габитусом, а также более плотной мякотью. Статус этого таксона остаётся предметом дискуссий (рассматривается как разновидность или как отдельный вид).
Leccinum duriusculum
Основные различия
Подберёзовик твердоватый (Leccinum duriusculum) растёт под тополями (прежде всего под осиной). Его мякоть при повреждении краснеет, затем сереет или чернеет, а у основания ножки появляется зеленоватый оттенок.
Leccinum pseudoscabrum
Основные различия
Грабовик (Leccinum pseudoscabrum) отличается микоризной связью с грабом и потемнением повреждённой мякоти.
Leccinum versipelle
Основные различия
Подосиновик жёлто-бурый (Leccinum versipelle) в коричневой цветовой форме иногда путают с подберёзовиком обыкновенным, однако его мякоть на разрезе заметно сереет и темнеет.
FAQ
Какие признаки выделяют ножку подберёзовика обыкновенного?
Ножка стройная, цилиндрическая, беловатая и густо покрыта мелкими чешуйками окраски от серой через коричневую до черноватой. По мере роста плодового тела она становится волокнистой и одревесневшей.
Является ли подберёзовик обыкновенный съедобным грибом?
Да, это широко собираемый и вкусный съедобный гриб. Особенно ценятся молодые шляпки. Ножки более старых экземпляров бывают жёсткими и волокнистыми, поэтому их часто выбрасывают.
Можно ли перепутать подберёзовик обыкновенный с ядовитым грибом?
В Польше нет смертельно ядовитых трубчатых грибов с такой внешностью. Неопытные грибники могут спутать его с желчным грибом, который обладает горьким вкусом и розовеющими с возрастом порами.
В какие месяцы встречается подберёзовик обыкновенный?
Плодовые тела обычно появляются с лета до поздней осени, чаще всего с июня или июля до конца октября, с пиком плодоношения в сентябре после тёплых и влажных дней.
Чем отличается подберёзовик обыкновенный от подосиновика красного?
У подосиновика красного оранжевая шляпка, мякоть темнеет до серо-чёрного цвета и синеватая у основания ножки. У подберёзовика обыкновенного шляпка серо-коричневая, а мякоть может слабо розоветь, коричневеть или сереть.
Под какими деревьями растёт подберёзовик обыкновенный?
Этот гриб образует микоризу исключительно с берёзами. Его можно встретить в берёзовых, смешанных лесах, на опушках рощ и на торфяниках везде, где растут берёзы.
Какие части плодового тела лучше всего подходят для кулинарной переработки?
Наиболее ценятся шляпки молодых плодовых тел плотной структуры. Ножки старых грибов становятся волокнистыми, поэтому их обычно сушат и перемалывают в приправу либо просто выбрасывают.
Меняет ли мякоть подберёзовика обыкновенного цвет на разрезе?
Мякоть типичного подберёзовика белая или кремовая и в целом не меняет цвет при повреждении и не синеет, в отличие от некоторых других обабков (например, подберёзовика разноцветного).
Любитель
Нижняя сторона шляпки
- Длина трубочек
- Длина трубочек: 8–19 mm.
Названия и история
- Obowiązująca nazwa krajowa
- koźlarz babka
- Obowiązująca nazwa taksonomiczna
- Leccinum scabrum
Наблюдения дома
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: коричневый.
- Оттенок спорового отпечатка
- Оттенок спорового отпечатка: Оливково-коричневый. Оттенок спорового отпечатка: Оливково-буроватая.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: веретеновидный. Форма споры: веретеновидный. Форма споры: удлинённо-эллипсоидный. Форма споры: почти веретеновидный.
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 13–22 µm, ширина 4–6,5 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Реакция почвы
- Реакция почвы: кислый.
- Гранулометрический состав почвы
- Гранулометрический состав почвы: песчаный.
- Влажность почвы
- Влажность почвы: сухой.
Влажность почвы: Влажная. - Микоризные партнёры
- Общая связь вида: Микоризные партнёры: Betula (общий перечень партнёров).
История и культура
Вид был научно описан Жаном-Батистом Бюйяром как Boletus scaber, а в 1821 году Сэмюэл Фредерик Грей перенес его в род Leccinum, образовав действующую комбинацию Leccinum scabrum. В польской народной традиции и региональной номенклатуре этот гриб получил ряд обиходных названий, таких как babka, koźlak, brzeziak или podbrzeźniak, которые напрямую указывают на его симбиоз с березой.
В этномикологических исследованиях подчеркивается сильная позиция подберезовиков в культуре собирательства Центральной и Восточной Европы. Однако эти записи остаются описанием более широкой группы: в сознании грибников подберезовики функционируют как собирательный народный таксон (Leccinum spp.), в рамках которого не различаются отдельные биологические виды с коричневыми шляпками. Таким образом, любые традиционные верования, давние обычаи сбора и названия на практике относятся ко всей группе подберезовиков, связанных с березами, а не исключительно к узко понимаемому Leccinum scabrum в смысле современной таксономии.
Съедобность и безопасность
Подберезовик обыкновенный (Leccinum scabrum) является общепризнанным съедобным грибом с мягким вкусом и тонким лесным запахом. В пищевых целях собирают прежде всего молодые, плотные и упругие плодовые тела. Зрелые и более старые экземпляры быстро дрябнут, становятся губчатыми и склонными к напитыванию водой, а мякоть в их ножках древеснеет и становится твердой и волокнистой, из-за чего они теряют кулинарную пригодность.
Этот вид безусловно требует термической обработки перед употреблением и не может употребляться в сыром виде. К основным способам приготовления относятся варка, тушение или жарка. Во время варки и тепловой обработки мякоть подберезовика обыкновенного естественно темнеет, приобретая сероватую или темно-коричневую окраску, что является типичной чертой этого гриба. В кулинарных целях следует использовать исключительно здоровые, свежие и неповрежденные экземпляры, отбраковывая перезрелые, чрезмерно размягченные плодовые тела или имеющие следы повреждения насекомыми.
Местообитание и встречаемость
Подберезовик обыкновенный — микоризный гриб, тесно связанный с березами (Betula spp.), в частности с березой повислой и пушистой. Встречается в лиственных и смешанных лесах с участием этого дерева, в молодняках, чистых березняках, а также на торфяниках, вересковых пустошах и влажных лесных полянах. Предпочитает кислые, песчаные и песчано-глинистые почвы.
Географический ареал в определенном понимании охватывает умеренную и холодную зоны Европы, где этот вид обычен. В микологической литературе указывалось также на распространение в других регионах Северного полушария, однако современные молекулярные исследования заставляют проявлять осторожность в обобщениях относительно ареала. В более новых публикациях материал происхождением из Азии приводится с оговоркой как Leccinum cf. scabrum из-за таксономических сомнений и необходимости пересмотра определений.
В условиях Центральной Европы, в том числе в Польше, сезон плодоношения длится с раннего лета до поздней осени. Согласно национальным фенологическим данным, плодовые тела появляются с июня по ноябрь (VI–XI), в зависимости от осадков и температуры почвы.
Исследователь
Съедобность и кулинария
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Съедобность
- Съедобный — źródło oznaczenia
Źródło bez opisu bibliograficznego · Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Źródło bez opisu bibliograficznego · Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Научные названия и таксономия
- Действующее научное название
Leccinum scabrum
Leccinum scabrum (Bull.) Gray należy do rodziny Boletaceae w rzędzie Boletales (podklasa Agaricomycetidae, klasa Agaricomycetes, typ Basidiomycota, królestwo Fungi). Połączenie Graya zostało opublikowane w Natural Arrangement of British Plants 1:647 (1821). Bazionimem jest Boletus scaber Bull. z dzieła Herbier de la France 3, tablica 132. Rejestr Species Fungorum podaje datę 1783 [1782–83], natomiast rewizja taksonomiczna z 2005 r. wskazuje 1782 r.; rozbieżność ta pozostaje odnotowaną różnicą bibliograficzną.
Wśród historycznych ujęć i kombinacji taksonomicznych znajdują się m.in. Suillus scaber, Krombholzia scabra, Gyroporus scaber, Ceriomyces scaber, Tubiporus scaber, Krombholziella scabra oraz Trachypus scaber. W piśmiennictwie mykologicznym opisano również liczne odmiany i formy pod odrębnymi nazwiskami autorów i datami. Przynależność do dzisiejszej synonimii nie oznacza jednak tożsamego zakresu każdego dawnego ujęcia taksonomicznego.
Границы таксона и ограничения определения
W literaturze odnotowano angielską nazwę zwyczajową Birch Bolete (bez przypisania do konkretnego obszaru anglojęzycznego). Niemiecka nazwa Gemeiner Birkenpilz nie ma bezpośredniego potwierdzenia w wykorzystanych źródłach.
Den Bakker i Noordeloos w rewizji z 2005 r. przyjęli szerokie ujęcie Leccinum scabrum, włączając do niego taksony opisywane pod nazwami roseofractum, avellaneum, rigidipes oraz subcinnamomeum. W tym ujęciu różowienie lub czerwienienie miąższu mieści się w naturalnej zmienności gatunku. Leccinum melaneum został w tej pracy potraktowany jako odrębny takson, a hipoteza o jego mieszańcowym pochodzeniu pozostaje nierozstrzygnięta (czeska literatura ujmuje go jako odmianę lub osobny gatunek). Z kolei Leccinum rotundifoliae w rewizji z 2005 r. uznano za odrębny takson, podczas gdy Species Fungorum włącza tę nazwę do synonimii L. scabrum.
Takson Leccinum oxydabile jest obecnie włączany do synonimii Leccinum scabrum w bazie Species Fungorum, choć inne bazy danych i rejestry mykologiczne (takie jak Checklist, GBIF czy MycoBank) bywają przywoływane w literaturze w kontekście odmiennych przypisań taksonomicznych. Cech dawnych ujęć tego taksonu nie należy bezkrytycznie przenosić na współcześnie definiowany gatunek.
Brak sinienia miąższu nie jest cechą wystarczającą do bezwzględnego oznaczenia gatunku, gdyż nietypowe owocniki innych gatunków (np. Leccinum snellii czy L. schistophilum) mogą nie wykazywać typowej dla siebie reakcji barwnej. Oznaczenie wymaga uwzględnienia budowy mikroskopowej skórki, zarodników i kaulocystyd. Reakcje chemiczne miąższu (brak reakcji lub słabe czerwienienie z formaliną oraz próby z FeSO4) mają zmienny przebieg zależny od wieku i wilgotności owocnika, przez co nie stanowią jednoznacznych kryteriów kluczowych.
- Zakres ujęcia taksonomicznego
Leccinum scabrum (Bull.) Gray; each literature report retains its own explicitly stated source concept. Den Bakker and Noordeloos2005 pp.547–550 are the wider concept including L.roseofractum, L.avellaneum and L.rigidipes. Gargano material is SAF545. No assignment of neighbouring species descriptions or subsection Scabra general characters.
[9] [10]
Экология и распространение
- Частота встречаемости
- Польша: Частота встречаемости: обычный. [10]
Лабораторная диагностика
Dane ustrukturyzowane
Базидии
Каулоцистиды
Гимениальные цистиды
- Длина гимениальной цистиды
- Длина гимениальной цистиды: 30–50 µm. [4]
- Форма гимениальной цистиды
- Форма гимениальной цистиды: веретеновидная до бутылковидной. [4]
Форма гимениальной цистиды: цилиндрический. [4]
Форма гимениальной цистиды: булавовидный. [4]
Форма гимениальной цистиды: Бутылковидная. [4] - Ширина гимениальной цистиды
- Ширина гимениальной цистиды: 5,5–7,5 µm. [4]
Кожица шляпки
- Ширина элементов кожицы шляпки
- Ширина элементов кожицы шляпки: 3,5–8 µm. [4]
Ширина элементов кожицы шляпки: 8–17 µm. [4]
Ширина элементов кожицы шляпки: 7,5–16 µm. [4] - Инкрустация гиф кожицы
- Инкрустация гиф кожицы: присутствует. [4]
- Окраска пигмента кожицы
- Окраска пигмента кожицы: коричневый. [4]
- Строение кожицы шляпки
- Строение кожицы шляпки: кутис. [4]
- Форма концевых клеток пилеипеллиса
- Форма концевых клеток пилеипеллиса: конический. [4]
Споры
- Содержимое споры
- Содержимое споры: с вакуолями. [8]
- Капли внутри споры
- Капли внутри споры: присутствует. [8]
- Длина споры
- Длина споры: 13–20 µm. [10]
Длина споры: 13,5–22 µm. [4]
Длина споры: 13–21 µm. [8]
Длина споры: 13–20 µm. [5] - Отношение длины споры к ширине
- Отношение длины споры к ширине: 2,5–3,5. [4]
- Форма споры
- Форма споры: веретеновидный. [4]
Форма споры: веретеновидный. [10]
Форма споры: удлинённо-эллипсоидный. [8]
Форма споры: почти веретеновидный. [8] - Надапикулярная депрессия базидиоспоры
- Надапикулярная депрессия базидиоспоры: присутствует. [4]
- Толщина оболочки споры
- Толщина оболочки споры: тонкостенный. [8]
Материал и методы исследований
Metody i zapisy źródłowe — Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki; Długość kaulocystyd; Szerokość kaulocystyd; Długość cystydy hymenialnej; Szerokość cystydy hymenialnej; Szerokość elementów skórki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [4]
Kształt kaulocystyd; Kształt cystydy hymenialnej; Inkrustacja strzępek skórki; Barwa pigmentu skórki; Organizacja skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.” [4]
Metody i zapisy źródłowe — Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.
Identyfikacja kropli: nierozstrzygnięta.
Zawartość zarodnika; Krople wewnątrz zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika — zapis źródłowy: „Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [8]
Metody i zapisy źródłowe — Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [10]
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.” [10]
Metody i zapisy źródłowe — Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [5]
Проверка распространения — объём и ограничения
Materiał: Pierwotna kolekcja autora atlasu z Kotliny Kłodzkiej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[10]Объём проверки
Перед завершением запись требует дополнения или проверки.
- Поиск регионов произрастания требует уточнения.
- Взаимосвязи прежних данных требуют повторной проверки.
- Новые источники требуют учёта сведений, обнаруженных в ходе обзора.
Правовая основа и объём оценки
Нормы для локации: Польша
Основание сведений об охране
Koźlarz babka nie jest objęty w Polsce gatunkową ochroną ścisłą ani częściową.
[6]Основание сведений о торговле
Koźlarz babka (wszystkie odmiany) figuruje w polskim wykazie grzybów dopuszczonych do obrotu i produkcji przetworów grzybowych, poz.15.
[7]Важнейшие вещества и их действие
Analizę biochemiczną wysuszonej i zmielonej próby SAF545 przeprowadziło laboratorium EcamRicert (raport 20LA09820 z 28 lipca 2020 r.) w trzech powtórzeniach technicznych, metodami analitycznymi według Baldini i in. (1996), z przelicznikiem białka N × 6,25 i oszacowaniem niepewności według UNI ISO 3534-1:2000.
Skład podstawowy i wartość energetyczna suchej zmielonej próby (wartości na 100 g):
- Sucha masa: 91,29 ± 0,38 g
- Wilgotność: 8,71 ± 0,38 g
- Białko ogólne (N × 6,25): 31,7 ± 1,3 g
- Tłuszcz ogólny: 3,64 ± 0,22 g
- Węglowodany: 31,57 ± 2,44 g
- Błonnik pokarmowy (wysokocząsteczkowy): 18,9 ± 2,0 g
- Popiół: 5,48 ± 0,30 g
- Wartość energetyczna: 324 ± 5 kcal (1361 ± 21 kJ).
Zawartość cukrów w suchej zmielonej próbie (g/100 g):
- Glukoza: 2,63 ± 0,41
- Fruktoza: 0,334 ± 0,053
- Laktoza: < 0,010
- Sacharoza: < 0,010
- Maltoza: < 0,010
- Cukry ogółem: 2,964 ± 0,413.
Zawartość witamin (%) i składników mineralnych (mg/kg) w suchej zmielonej próbie:
- Witamina D3: < 0,00002%
- Witamina B1: < 0,00001%
- Witamina B2: 0,0016 ± 0,0002%
- Witamina B3: 0,0146 ± 0,0015%
- Witamina B5: 0,0019 ± 0,0002%
- Witamina B6: < 0,00003%
- Witamina B8: < 0,00003%
- Witamina B12: < 0,000005%
- Sód (Na): 0,028 ± 0,006 mg/kg
- Potas (K): 2,25 ± 0,53 mg/kg
- Żelazo (Fe): < 0,003 mg/kg
- Wapń (Ca): < 0,025 mg/kg
- Fosfor (P): 3710,0 ± 670,0 mg/kg
- Magnez (Mg): 590,0 ± 130,0 mg/kg
- Cynk (Zn): 71,0 ± 13,0 mg/kg
- Miedź (Cu): 16,8 ± 3,2 mg/kg
- Selen (Se): 7,4 ± 1,8 mg/kg
- Mangan (Mn): 6,6 ± 1,3 mg/kg
- Nikiel (Ni): 1,01 ± 0,18 mg/kg
- Chrom (Cr): 0,84 ± 0,16 mg/kg
- Siarka całkowita (S): 8200,0 ± 1,50 mg/kg.
Profil kwasów tłuszczowych w suchej zmielonej próbie (g/100 g):
- Kwas masłowy (4:0): < 0,010
- Kwas kapronowy (6:0): < 0,010
- Kwas enantowy (7:0): < 0,010
- Kwas kaprylowy (8:0): < 0,010
- Kwas kaprynowy (10:0): < 0,010
- Kwas kaproleinowy (10:1): < 0,010
- Kwas laurynowy (12:0): < 0,010
- Kwas lauroleinowy (12:1 n-3): < 0,010
- Kwas izomirystynowy (14:0 iso): 0,0010
- Kwas mirystynowy (14:0): 0,0073 ± 0,0017
- 14:1 (suma): < 0,0010
- Kwas pentadekanowy (15:0): 0,0094 ± 0,0021
- 15:1 (suma): 0,0093 ± 0,0021
- Kwas sarcinowy (15:0 ante-iso): < 0,0010
- Kwas izopalmitynowy (16:0 iso): < 0,0010
- Kwas anteizopalmitynowy (16:0 ante-iso): < 0,0010
- Kwas palmitynowy (16:0): 0,372 ± 0,056
- 17:0 ante-iso: 0,0088 ± 0,0020
- Kwas margarynowy (17:0): 0,00366 ± 0,00100
- Kwas margarynowy (17:0 iso): < 0,0010
- 17:1 (suma): 0,0098 ± 0,0020
- Kwas palmitooleinowy (16:1 suma): 0,0224 ± 0,0048
- Kwas izostearynowy (18:0 iso): 0,0348 ± 0,0074
- Kwas anteizostearynowy (c-18:0 ante-iso): < 0,0010
- Kwas stearynowy (18:0): 0,075 ± 0,016
- Kwas oleinowy (18:1 suma): 1,05 ± 0,13
- 19:0: < 0,0010
- 19:0 ante-iso: < 0,0010
- 19:1 (suma): < 0,0010
- Kwas arachidowy (20:0): 0,0055 ± 0,0013
- Kwas izoarachidowy (20:0 iso): < 0,0010
- Kwas α-linolenowy (18:3 suma): 0,0085 ± 0,0017
- Kwas gadoleinowy (20:1 suma): 0,0145 ± 0,0031
- Sprzężony kwas linolowy (suma 18:2 CLA): < 0,0010
- Kwas heneikozanowy (21:0): < 0,0010
- Kwas stearydonowy (18:4 n-3): 0,0146 ± 0,0031
- Kwas behenowy (22:0): 0,0042 ± 0,0011
- 22:1: 0,00206 ± 0,00077
- Kwas lignocerynowy (24:0): 0,00231 ± 0,00080
- Wielonienasycone kwasy tłuszczowe >C20: 0,00183 ± 0,00074
- Kwasy tłuszczowe nasycone (SFA): 0,523 ± 0,059
- Kwasy tłuszczowe jednonienasycone (MUFA): 1,11 ± 0,12
- Kwasy tłuszczowe wielonienasycone (PUFA): 1,98 ± 0,23
- Stosunek kwasów PUFA/MUFA: 1,78 ± 0,29
- Stosunek kwasów PUFA/SFA: 3,79 ± 0,62.
Zawartość wolnych aminokwasów i związków pokrewnych w suchej zmielonej próbie (g/100 g):
- Kwas asparaginowy: 0,1124 ± 0,0082
- Kwas glutaminowy: 0,4318 ± 0,0313
- Alanina: 1,0600 ± 0,0769
- Arginina: 0,4556 ± 0,0331
- Asparagina: 0,1575 ± 0,0114
- Cystyna: < 0,0100
- Prolina: 0,1005 ± 0,0073
- Fenyloalanina: 0,0311 ± 0,0024
- Glicyna: 0,2679 ± 0,0194
- Glutamina: 0,9199 ± 0,0667
- Izoleucyna: 0,0222 ± 0,0017
- Histydyna: 0,1353 ± 0,0098
- Leucyna: 0,0300 ± 0,0023
- Lizyna: 0,2170 ± 0,0158
- Metionina: < 0,0100
- Ornityna: 0,2085 ± 0,0151
- Seryna: 0,3202 ± 0,0232
- Tyrozyna: 0,0538 ± 0,0040
- Treonina: 0,2762 ± 0,0200
- Walina: 0,1220 ± 0,0089
- Kwas γ-aminomasłowy (GABA): 0,3900 ± 0,0283
- Kwas α-aminomasłowy: < 0,0010
- Wolne aminokwasy ogółem: 5,31 ± 0,13.
W profilu lipidowym zmielonej próby wielonienasycone kwasy tłuszczowe (PUFA) stanowią 1,98 ± 0,23 g/100 g, jednonienasycone (MUFA) 1,11 ± 0,12 g/100 g, a nasycone (SFA) 0,523 ± 0,059 g/100 g, przy proporcjach PUFA/MUFA wynoszącej 1,78 ± 0,29 oraz PUFA/SFA równej 3,79 ± 0,62. Pula wolnych aminokwasów wynosi 5,31 ± 0,13 g/100 g, z istotnym udziałem alaniny, glutaminy oraz kwasu γ-aminomasłowego (GABA, 0,3900 ± 0,0283 g/100 g).
Dane analityczne badanej próby wykazują następujące poziomy wybranych mikroskładników: witamina D3 poniżej 0,00002%, żelazo poniżej 0,003 mg/kg, wapń poniżej 0,025 mg/kg, sód 0,028 ± 0,006 mg/kg, a potas 2,25 ± 0,53 mg/kg suchej masy, przy wyższych poziomach fosforu (3710,0 ± 670,0 mg/kg) i siarki całkowitej (8200,0 ± 1,50 mg/kg).
Średnice stref zahamowania wzrostu w próbie krążkowej wyniosły:
- Listeria monocytogenes ATCC 19114: MAE: 13,5 ± 0,2 mm; UAE: 12,0 ± 0,1 mm (różnica istotna statystycznie, P < 0,01)
- Staphylococcus aureus subsp. aureus ATCC 33862: MAE: 12,5 ± 0,1 mm; UAE: 12,5 ± 0,1 mm
- Salmonella enterica subsp. enterica ATCC 13076: MAE: 11,5 ± 0,2 mm; UAE: 11,0 ± 0,1 mm
- Escherichia coli ATCC 25922: MAE: 10,5 ± 0,2 mm; UAE: 10,0 ± 0,2 mm.
Stopień zahamowania wzrostu bakterii w teście mikrorozcieńczeń (kategorie autorów: brak: −; niskie ≤35%: +; umiarkowane >35–70%: ++; wysokie >70%: +++):
100 mg/mL
- L. monocytogenes: MAE 99,80% (+++); UAE 94,90% (+++)
- S. aureus: MAE 99,75% (+++); UAE 95,38% (+++)
- S. enterica: MAE 99,76% (+++); UAE 99,79% (+++)
- E. coli: MAE 99,83% (+++); UAE 97,97% (+++)
50 mg/mL
- L. monocytogenes: MAE 92,92% (+++); UAE 79,58% (+++)
- S. aureus: MAE 61,93% (++); UAE 66,43% (++)
- S. enterica: MAE 81,77% (+++); UAE 89,94% (+++)
- E. coli: MAE 93,40% (+++); UAE 80,07% (+++)
25 mg/mL
- L. monocytogenes: MAE 74,11% (+++); UAE 57,60% (++)
- S. aureus: MAE 40,82% (++); UAE 46,76% (++)
- S. enterica: MAE 46,65% (++); UAE 67,62% (++)
- E. coli: MAE 75,51% (+++); UAE 66,67% (++)
12,5 mg/mL
- L. monocytogenes: MAE 39,15% (++); UAE 31,08% (+)
- S. aureus: MAE 25,04% (+); UAE 20,75% (+)
- S. enterica: MAE 55,39% (++); UAE 43,44% (++)
- E. coli: MAE 51,32% (++); UAE 51,94% (++)
6,25 mg/mL
- L. monocytogenes: MAE 30,12% (+); UAE 18,33% (+)
- S. aureus: MAE 24,32% (+); UAE 22,30% (+)
- S. enterica: MAE 43,22% (++); UAE 42,82% (++)
- E. coli: MAE 46,73% (++); UAE 39,26% (++)
3,125 mg/mL
- L. monocytogenes: MAE 23,97% (+); UAE 15,58% (+)
- S. aureus: MAE 19,03% (+); UAE 16,33% (+)
- S. enterica: MAE 37,26% (++); UAE 28,90% (+)
- E. coli: MAE 27,61% (+); UAE 19,13% (+)
1,5625 mg/mL
- L. monocytogenes: MAE 17,50% (+); UAE 12,13% (+)
- S. aureus: MAE 6,38% (+); UAE 10,63% (+)
- S. enterica: MAE 18,68% (+); UAE 20,70% (+)
- E. coli: MAE 23,18% (+); UAE 20,84% (+)
0,78125 mg/mL
- L. monocytogenes: MAE 14,19% (+); UAE 11,59% (+)
- S. aureus: MAE 4,13% (+); UAE 10,84% (+)
- S. enterica: MAE 5,07% (+); UAE 7,10% (+)
- E. coli: MAE 0,00% (−); UAE 10,52% (+).
W teście mikrorozcieńczeń oba ekstrakty w stężeniu 100 mg/mL silnie hamowały wzrost wszystkich czterech badanych szczepów (>70%). Przy stężeniu 50 mg/mL ekstrakt UAE hamował wzrost E. coli na wysokim poziomie 80,07%. Przy stężeniu 6,25 mg/mL ekstrakt UAE hamował wzrost S. enterica na poziomie umiarkowanym (42,82%). Przy najniższym testowanym stężeniu 0,78125 mg/mL ekstrakt MAE nie wykazywał hamowania wzrostu E. coli (0,00%), podczas gdy pozostałe warianty wykazywały niskie wartości hamowania.
Badania aktywności biologicznej ekstraktów wodnych opublikowano w czasopiśmie Mycology (online 2024, wydanie drukowane 16(1), 2025, s. 402–412; erratum z 2025 r. pod DOI 10.1080/21501203.2025.2461915). Przedstawione wyniki mają charakter wyłącznie laboratoryjnych testów in vitro.
Местообитание и встречаемость
Местообитание, регион и сезон
Koźlarz babka tworzy ektomikoryzę wyłącznie z brzozami (Betula). Wyrasta na ziemi, pojedynczo, w małych grupach lub gromadnie, w lasach, zaroślach, a także poza lasem – w parkach, ogrodach i na trawnikach pod brzozami. Preferuje gleby piaszczyste, suche do umiarkowanie wilgotnych, o odczynie słabo kwaśnym, pojawiając się m.in. w ubogich murawach z kostrzewą czerwoną (Festuca rubra) i śmiałkiem pogniecionym (Deschampsia flexuosa).
W Czechach koźlarz babka jest bardzo pospolity i występuje od nizin po tereny górskie w okresie od czerwca do listopada (udokumentowane znaleziska pochodzą m.in. z kraju środkowoczeskiego – 6 X 2024, pilzneńskiego – 18 VIII 2023, zlińskiego – 28 IX 2018 i Wysoczyzny – 14 IX 2017).
Gatunek jest szeroko rozprzestrzeniony w Europie (bardzo pospolity m.in. w Holandii) i wykazuje prawdopodobny zasięg okołobiegunowy; materiały zielnikowe pochodzą m.in. z Holandii, Finlandii oraz prowincji Ontario w Kanadzie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Источники |
|---|---|---|---|
| Польша | Клодзкая котловина | VI–XI |
|
Материалы
Гербарные коллекции
- 44
Нидерланды; Drenthe, Emmen; 1999-10-02; H.C. den Bakker
[2]- 50
Нидерланды; Drenthe, Nieuw Amsterdam; 1999-10-04; H.C. den Bakker
[2]- 54
Нидерланды; Drenthe, Borger, vicinity of cottage park Land van Bartje; 1999-10-05; H.C. den Bakker
[2]- 01-009
Нидерланды; Drenthe, Gieten, Boekweitveentje; 2001; R. Enzlin
[2]- 48
Нидерланды; Drenthe, Hoogeveen; leg.B.de Vries; 1999-10-03; H.C. den Bakker
[2]- 62
Нидерланды; Noord-Holland, Amsterdamse Waterleiding Duinen, Eiland van Rolvers; 1999-10-23; H.C. den Bakker
[2]- 58
Нидерланды; Zuid-Holland, Wassenaar, Meijendel; 1999-10-17; H.C. den Bakker
[2]- 42
Нидерланды; Zuid-Holland, Voorschoten; C.Bas; 1999-09-30; H.C. den Bakker
[2]- 124
Нидерланды; Utrecht, Zeist, Soesterberg; 2000-10-06; H.C. den Bakker
[2]- 1+2 (L), designated epitype
Франция; Guyancourt, along N12, vicinity of Versailles; 2001-09-27; J. van Brummelen
[2]- Сбор
Франция; Orne, Foret de Belleme; 2001-09-28; Van Brummelen
[2]- 95
Норвегия; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 91
Норвегия; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 87
Норвегия; Sogn og Fjordane, Sogndalsfjøra; IX 2000; H.C. den Bakker
[2]- 239
Великобритания; Scotland, Inverness-shire, Aberarder Forest; 2001-09-13; H.C. den Bakker
[2]- 231
Великобритания; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 237
Великобритания; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 4399 (E), holotype L.rigidipes
Великобритания; Scotland, Inverness-shire, Abernethy Forest; 1972-08-31; P. Orton
[2]- 4944 (E), holotype L.roseofractum
Великобритания; Scotland, Ross & Cromarty, Loch Maree; R. Watling
[2]- 22
Швеция; Jämtland, Borgsjö; 1999-08-24; H.C. den Bakker
[2]- 80
Швеция; Åre; 2000-09-04; H.C. den Bakker
[2]- 2003076
Великобритания; Wales, South Glamorgan, Merthyr-mawr sand dunes; A. Hills
[2]- SAF545
Польша; Białowieża forest, Podlaskie; literal published location, not geocoded; summer; exact date/year unreported
[2]
Источники
- leccinum_scabrum.source-collections
- src-bakker 2005
- src-cms-scabrum
- src-eli-protection-2014
- src-eli-trade-2026
- src-gargano 2024
- src-gbif-leccinum_scabrum
- src-snowarski-scabrum