
Jedlý

Nastavte polohu, aby sa zobrazili údaje pre váš región.
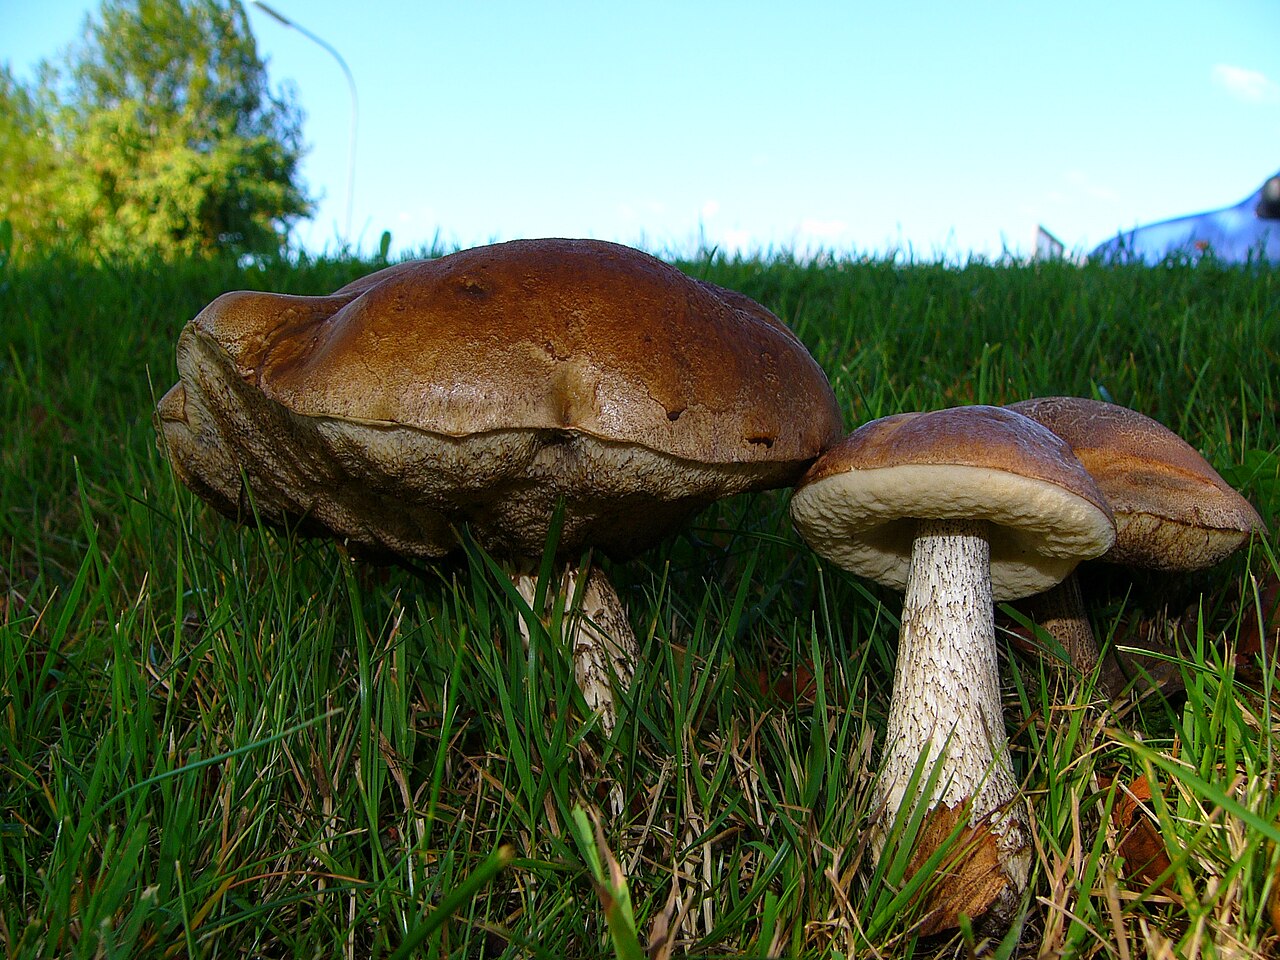
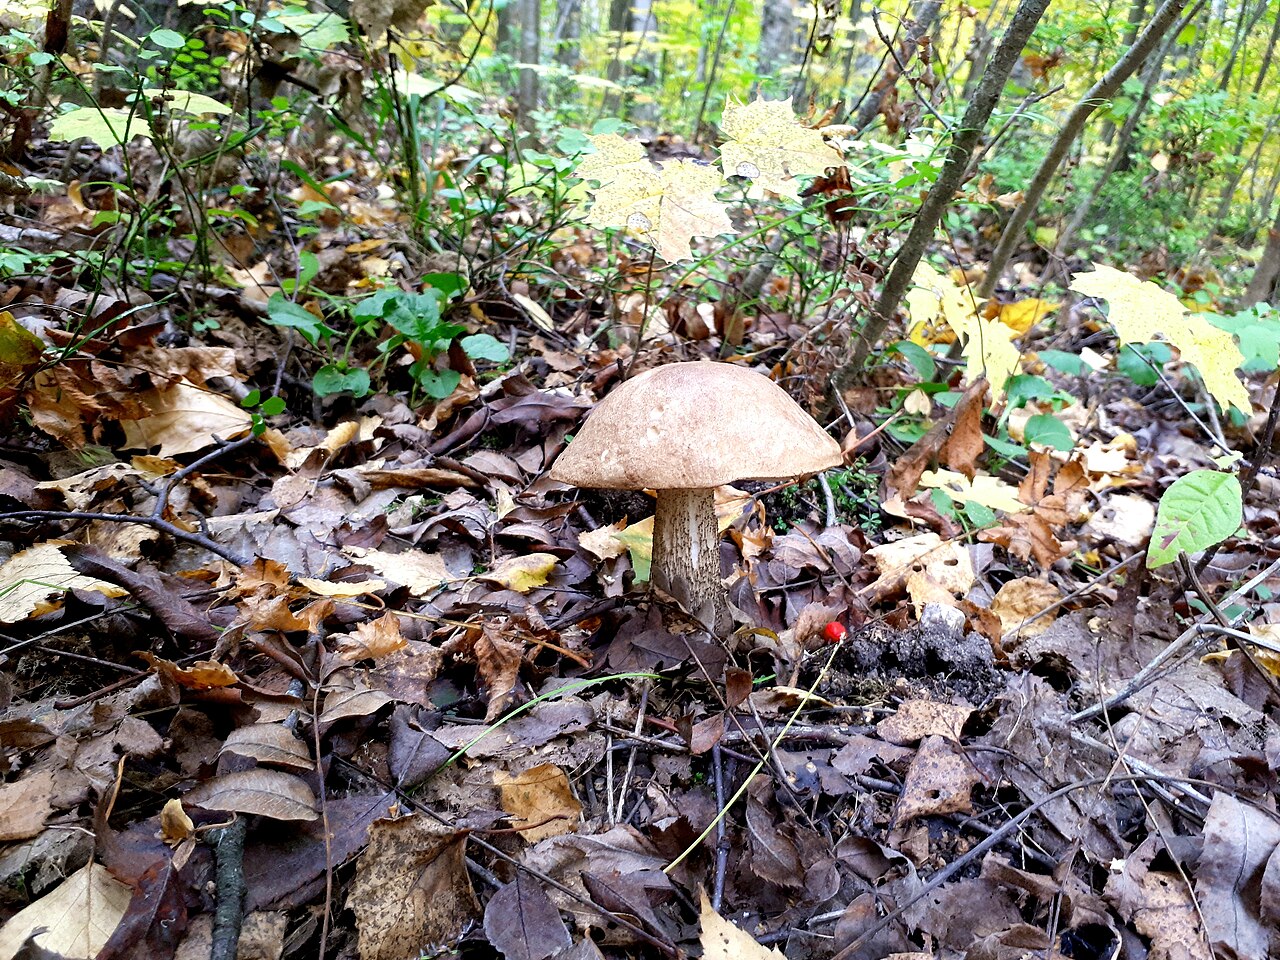
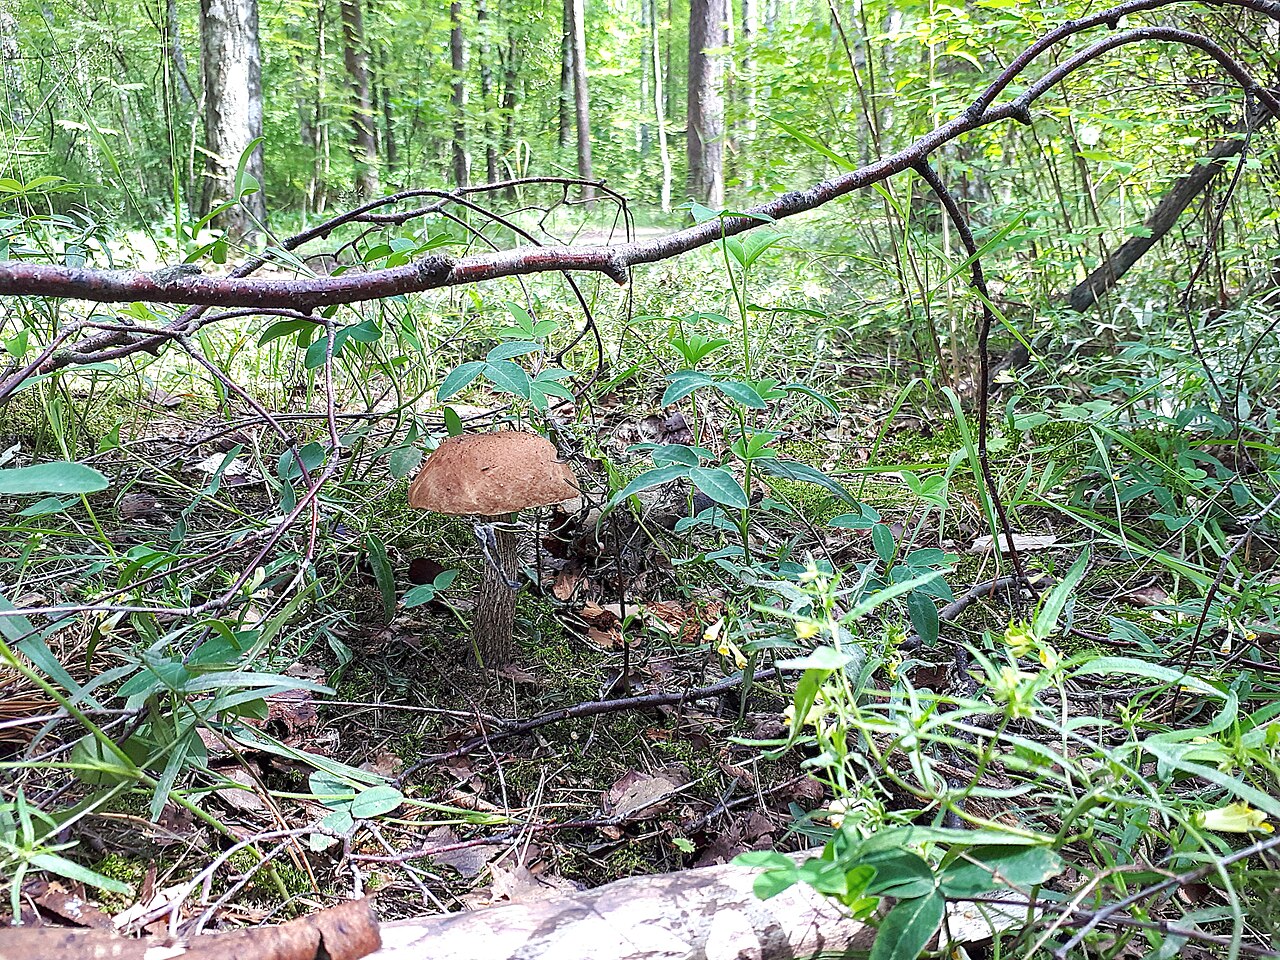
Kozák brezový (Leccinum scabrum) je v Poľsku bežná jedlá huba tvoriaca mykorízu s brezami. Vyskytuje sa v listnatých a zmiešaných lesoch od leta do jesene. Klobúk má poduškovitý, v odtieňoch sivej, hnedej alebo okrovej farby, so suchým a hladkým povrchom. Hymenofor tvoria drobné rúrky s belavými, vekom sivejúcimi pórmi. Hlúbik je štíhly, svetlý, pokrytý tmavými šupinkami. Dužina je belavá a po rozkrojení v zásade nemení farbu. Cenený je pre jemnú hubovú chuť.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
Klobúk
- Tvar klobúka
- pri mladých plodniciach: Tvar klobúka: polguľovitý.
pri zrelých plodniciach: Tvar klobúka: vypuklý.
pri starých plodniciach: Tvar klobúka: plochý.
Tvar klobúka: vypuklý. - Pokryv klobúka
- Pokryv klobúka: zamatový.
pri mladých plodniciach: Pokryv klobúka: plstnatý.
pri zrelých plodniciach: Pokryv klobúka: holá.
pri zrelých plodniciach: Pokryv klobúka: šupinatá. - Lepkavosť a slizkosť klobúka
- za mokra: Lepkavosť a slizkosť klobúka: lepkavý.
za mokra: Lepkavosť a slizkosť klobúka: slizký. - Farba klobúka
- Farba klobúka: Tmavohnedá.
Farba klobúka: žltohnedý.
Farba klobúka: hnedý.
Farba klobúka: okrovohnedý.
Farba klobúka: čiernohnedý.
Farba klobúka: sivohnedý.
Farba klobúka: orieškovohnedý.
Farba klobúka: červenohnedý. - Usporiadanie okraja
- Usporiadanie okraja: zahnutý nadol.
Usporiadanie okraja: zahnutý dovnútra. - Presah okraja klobúka cez hymenofor
- Presah okraja klobúka cez hymenofor: nepresahuje hymenofor.
Presah okraja klobúka cez hymenofor: presahujúci hymenofor. - Priemer klobúka
- Priemer klobúka je 30–200 mm.
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: rúrky.
Rúrky pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: prirastený k hlúbiku (rúrky).
- Šírka prirastenia hymenofóru
- Šírka prirastenia hymenofóru: široko prirastený (rúrky).
- Farba pórov po poranení
- Farba pórov po poranení: hnedkastý.
- Prirodzená farba pórov
- pri zrelých plodniciach: Prirodzená farba pórov: sivohnedý.
pri mladých plodniciach: Prirodzená farba pórov: biely. - Prirodzená farba rúrok
- pri zrelých plodniciach: Prirodzená farba rúrok: sivohnedý.
pri mladých plodniciach: Prirodzená farba rúrok: belavá.
Hlúbik a báza
- Tvar hlúbika
- Tvar hlúbika: valcovitý.
Tvar hlúbika: kyjakovitý. - Báza hlúbika
- Báza hlúbika: kyjakovitý.
- Farba hlúbika
- Farba hlúbika: belavá.
Farba hlúbika: Žltkastá.
Farba hlúbika: svetlohnedá. - Reliéf povrchu hlúbika
- Reliéf povrchu hlúbika: brázditý.
- Pokryv povrchu hlúbika
- Pokryv povrchu hlúbika: šupinatá.
- Farba ornamentácie hlúbika
- Farba ornamentácie hlúbika: černastý.
Farba ornamentácie hlúbika: sivastý.
Farba ornamentácie hlúbika: bledo hnedý.
Farba ornamentácie hlúbika: čierny.
Farba ornamentácie hlúbika: sivohnedý. - Vnútro hlúbika
- Vnútro hlúbika: plný.
- Konzistencia hlúbika
- Konzistencia hlúbika: tvrdý.
Konzistencia hlúbika: vláknitý. - Dĺžka hlúbika
- Dĺžka hlúbika: 50–200 mm.
- Priemer hlúbika
- Priemer hlúbika: 10–55 mm.
Dužina
- Farba dužiny
- Farba dužiny: belavá.
Farba dužiny: biely.
Farba dužiny: sivastý. - Pevnosť dužiny
- pri mladých plodniciach: Pevnosť dužiny: pevný.
pri starých plodniciach: Pevnosť dužiny: mäkký (dužina klobúka). - Farba dužiny po poranení
- Farba dužiny po poranení: bez zmeny farby.
Farba dužiny po poranení: bez zmeny farby.
Farba dužiny po poranení: ružovkastý.
Farba dužiny po poranení: červenkastý.
Kde a kedy rastie
- Stanovište
- Stanovište: park.
Stanovište: záhrada. - Substrát
- Substrát: pôda.
- Spôsob rastu plodníc
- Spôsob rastu plodníc: jednotlivo.
Spôsob rastu plodníc: v malých skupinách.
Spôsob rastu plodníc: v skupinách. - Frekvencia výskytu
- Frekvencia výskytu: hojný.
- Obdobie rastu
- Plodnice sa objavujú od júna do novembra.
- Oblasť výskytu
Jedlosť a kuchyňa
- Jedlosť
- Jedlý
Právo
- Ochrana
- Leccinum scabrum v Poľsku nepodlieha prísnej ani čiastočnej druhovej ochrane.
- Predaj
- Leccinum scabrum (všetky variety) je pod položkou 15 v poľskom zozname húb povolených na predaj a výrobu hubových výrobkov.
Možnosť zámeny
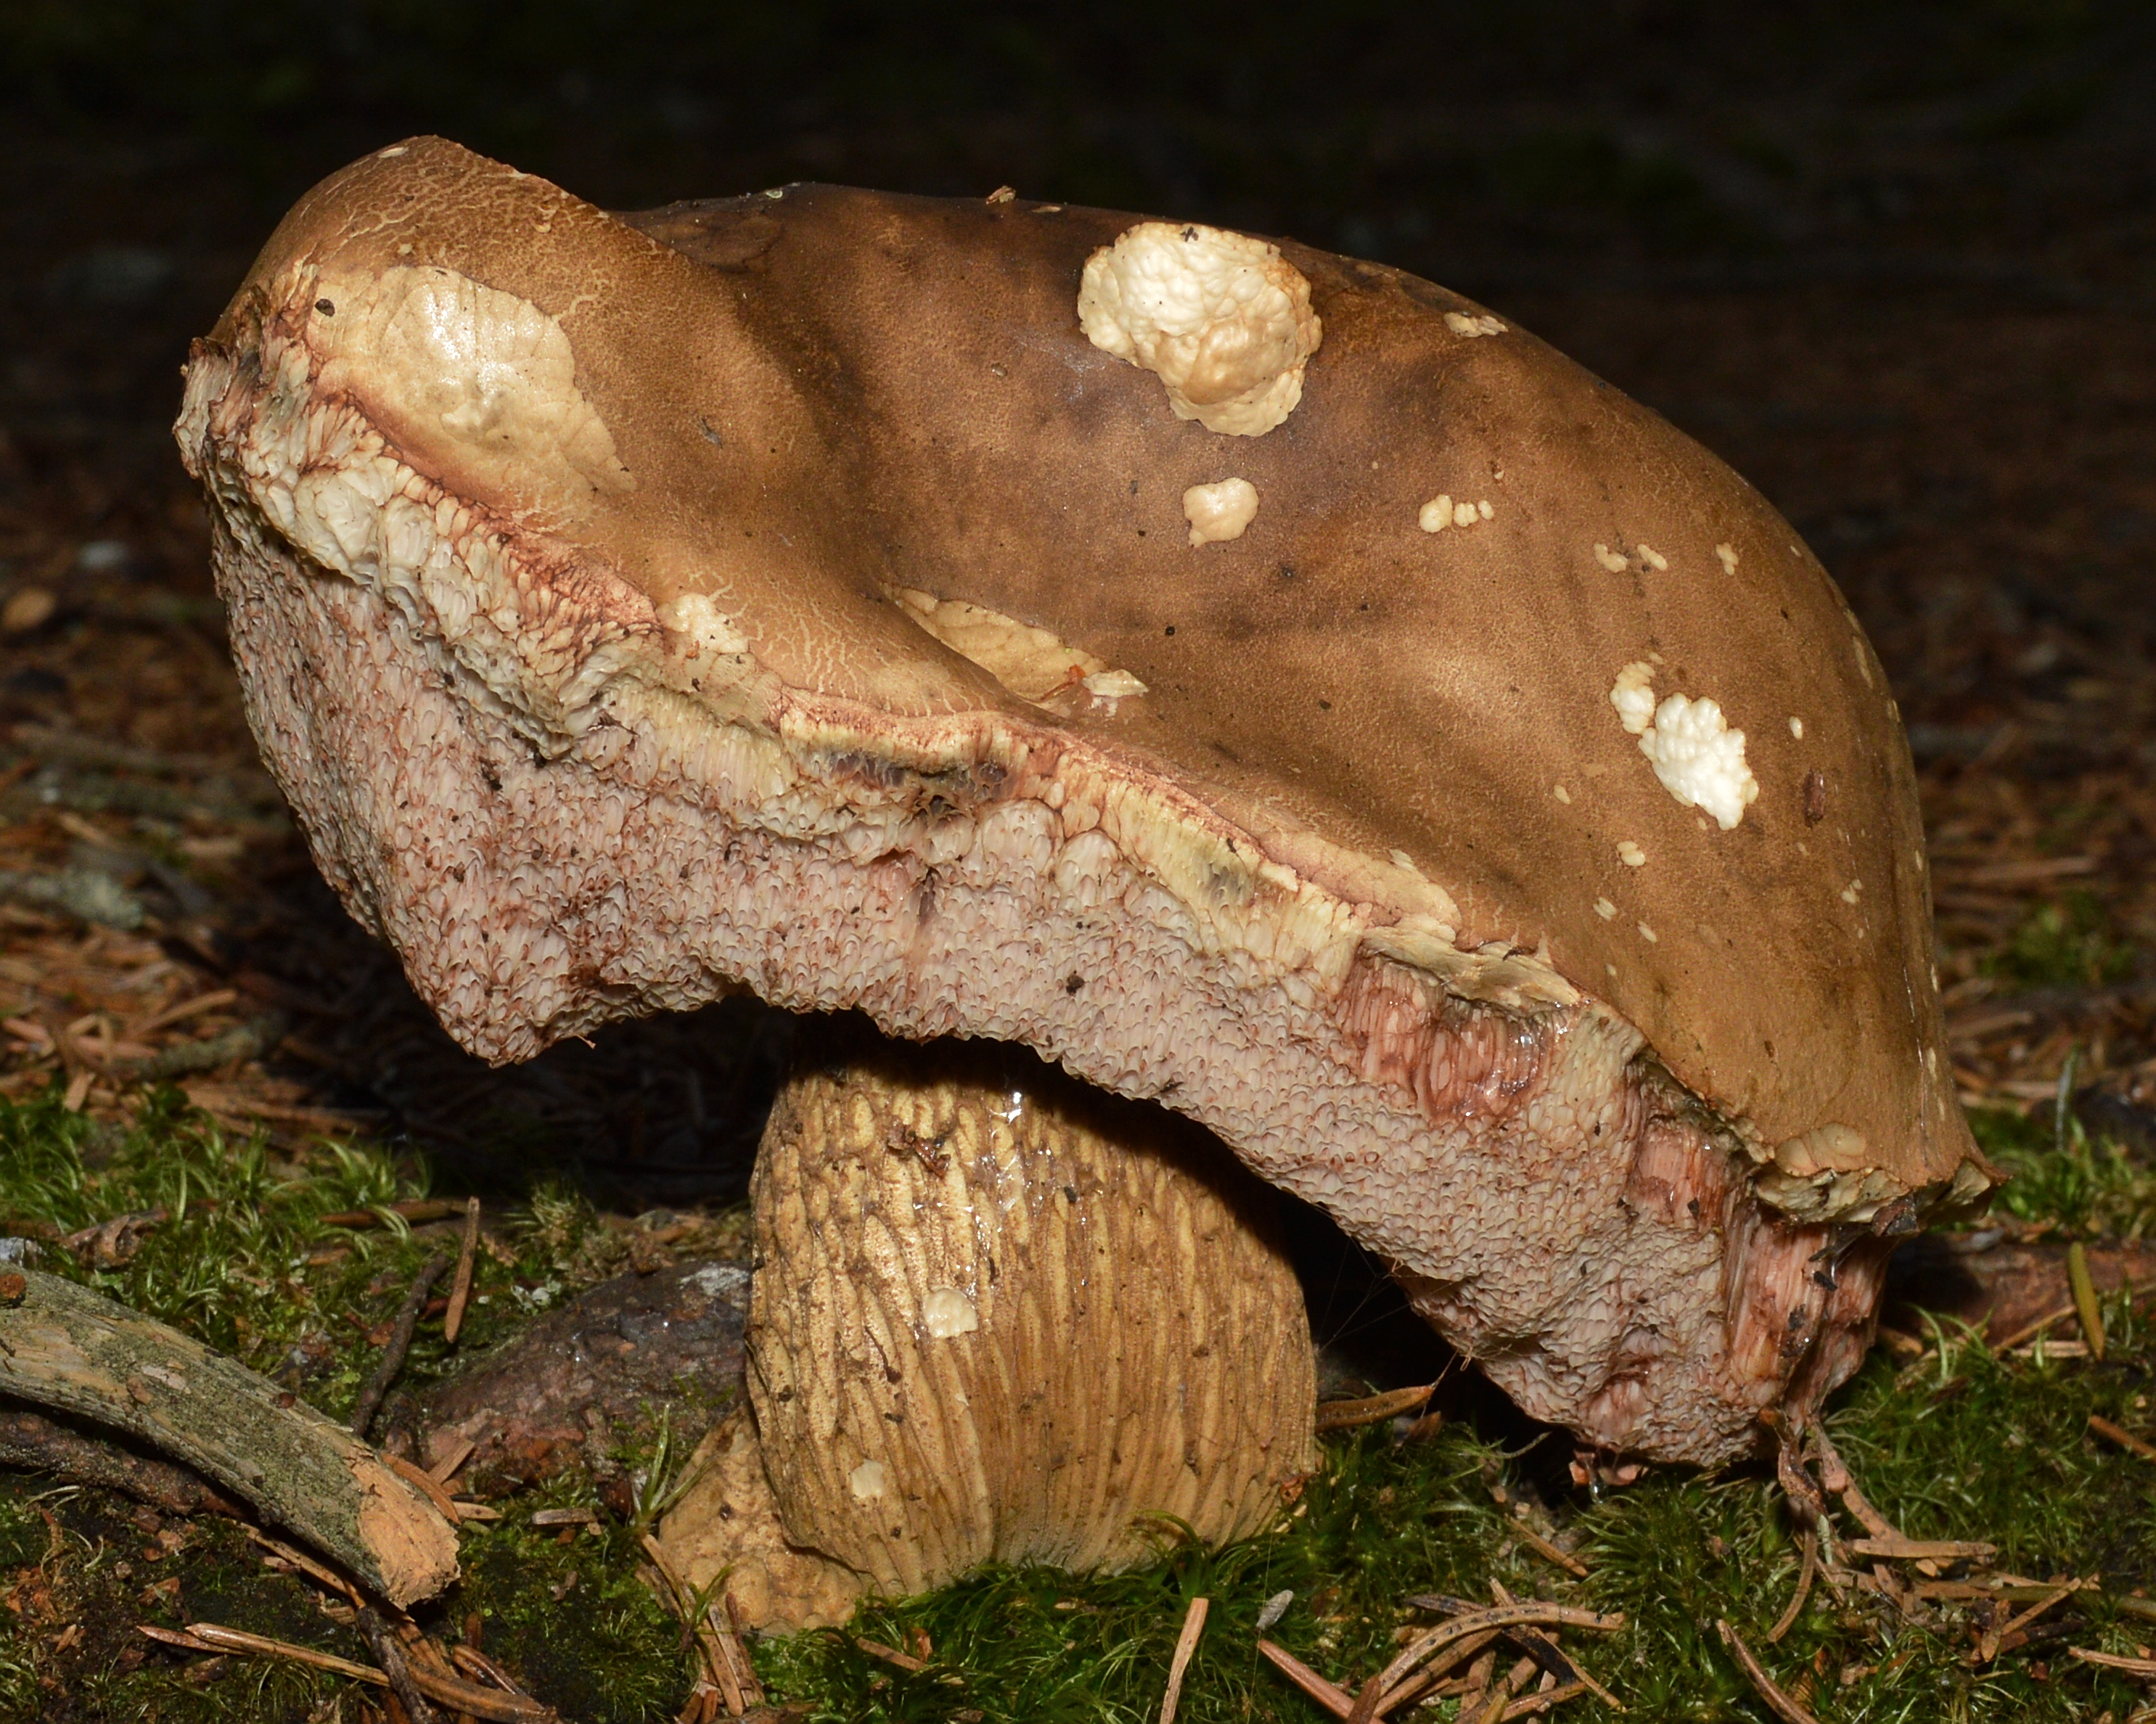
Tylopilus felleus
Hlavné rozdiely
Kozák brezový (Leccinum scabrum) môže pripomínať staršie, vyrastené plodnice podhríba žlčového. Odlišuje sa bielymi rúrkami bez ružovkastého odtieňa a hlúbikom pokrytým tmavými šupinkami, bez žltkastého podkladu a bez sieťky.
Leccinum variicolor
Hlavné rozdiely
Kozák pestrý (Leccinum variicolor) rastie takisto pod brezami, zvyčajne na vlhkejších stanovištiach. Odlišuje sa výrazným modrozeleným sfarbením dužiny na báze hlúbika, oneskoreným červenaním dužiny a často škvrnitým, tmavosivým až hnedým klobúkom.
Leccinum cyaneobasileucum
Hlavné rozdiely
Kozák belavý (Leccinum cyaneobasileucum) sa vyznačuje modrozeleným sfarbením bázy hlúbika, spravidla svetlejším klobúkom a bledými alebo bielymi šupinkami na hlúbiku.
Leccinum melaneum
Hlavné rozdiely
Kozák čiernohnedý (Leccinum melaneum) sa vyznačuje veľmi tmavým alebo takmer čiernym klobúkom, zavalitejším a masívnejším vzrastom a pevnejšou dužinou. Status tohto taxónu zostáva predmetom diskusií (býva ponímaný ako varieta alebo samostatný druh).
Leccinum duriusculum
Hlavné rozdiely
Kozák topoľový (Leccinum duriusculum) rastie pod topoľmi (predovšetkým pod osikou). Jeho dužina po poškodení červenie a následne sivie alebo černie a na báze hlúbika sa objavuje zelenkavé sfarbenie.
Leccinum pseudoscabrum
Hlavné rozdiely
Kozák hrabový (Leccinum pseudoscabrum) sa odlišuje mykoríznym spojením s hrabom a tmavnutím poškodenej dužiny.
Leccinum versipelle
Hlavné rozdiely
Kozák žltooranžový (Leccinum versipelle) v hnedej farebnej odrode býva zamieňaný s kozákom brezovým, no jeho dužina na reze výrazne sivie a tmavne.
FAQ
Aké znaky charakterizujú hlúbik kozáka brezového?
Hlúbik je štíhly, valcovitý, belavý a husto pokrytý drobnými šupinkami s farbou od sivej cez hnedú až po černastú. S rastom plodnice sa stáva vláknitým a zdrevnatelým.
Je kozák brezový jedlá huba?
Áno, je to všeobecne zbieraná a chutná jedlá huba. Cenené sú najmä mladé klobúky. Hlúbiky starších exemplárov bývajú tvrdé a vláknité, preto sa často vyraďujú.
Možno si kozáka brezového pomýliť s jedovatou hubou?
V Poľsku nie sú smrteľne jedovaté rúrkovité huby s takýmto vzhľadom. Neskúsení hubári si ho môžu pomýliť s podhríbom žlčovým, ktorý má horkú chuť a vekom ružovejúce póry.
V ktorých mesiacoch sa vyskytuje kozák brezový?
Plodnice sa objavujú zvyčajne od leta do neskorej jesene, najčastejšie od júna alebo júla do konca októbra, s vrcholom plodenia v septembri po teplých a vlhkých dňoch.
Čím sa líši kozák brezový od kozáka osikového?
Kozák osikový má oranžový klobúk, dužinu tmavnúcu do sivociernej a modrastú na báze hlúbika. Pri kozákovi brezovom je klobúk sivohnedý a dužina môže slabo ružovieť, hnednúť alebo sivieť.
Pod akými stromami rastie kozák brezový?
Táto huba vytvára mykorízu výlučne s brezami. Možno ju nájsť v brezových a zmiešaných lesoch, na okrajoch hájov a na rašeliniskách všade tam, kde rastú brezy.
Ktoré časti plodnice sa najlepšie hodia na spracovanie?
Najviac cenené sú klobúky mladých plodníc s pevnou štruktúrou. Hlúbiky starších húb bývajú lykovité, preto sa zvyčajne sušia a melú na korenie alebo sa jednoducho vyhadzujú.
Mení dužina kozáka brezového farbu po rozkrojení?
Dužina typického kozáka brezového je biela alebo krémová a v zásade nemení farbu po poškodení ani nemodrie, na rozdiel od niektorých iných kozákov (napr. kozáka pestrého).
Nadšenec
Spodná strana klobúka
- Dĺžka rúrok
- Dĺžka rúrok: 8–19 mm.
Názvy a história
- Obowiązująca nazwa krajowa
- koźlarz babka
- Obowiązująca nazwa taksonomiczna
- Leccinum scabrum
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách klobúk zdvihnite a prezrite si odtlačok.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: hnedý.
- Odtieň výtrusného prachu
- Odtieň výtrusného prachu: Olivovohnedá. Odtieň výtrusného prachu: Olivovohnedkastá.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: vretenovitý. Tvar výtrusu: vretenovitý. Tvar výtrusu: pretiahnuto elipsoidný. Tvar výtrusu: takmer vretenovitý.
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 13–22 µm, šírka 4–6,5 µm.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Ekológia a rozšírenie
- Pôdna reakcia
- Pôdna reakcia: kyslý.
- Zrnitosť pôdy
- Zrnitosť pôdy: piesčitý.
- Vlhkosť pôdy
- Vlhkosť pôdy: suchý.
Vlhkosť pôdy: Vlhká. - Mykorízni partneri
- Všeobecná väzba druhu: Mykorízni partneri: Betula (všeobecný zoznam partnerov).
História a kultúra
Druh vedecky opísal Jean Baptiste Bulliard ako Boletus scaber a v roku 1821 ho Samuel Frederick Gray preradil do rodu Leccinum, čím vytvoril platnú kombináciu Leccinum scabrum. V poľskej ľudovej tradícii a regionálnom názvosloví získala táto huba viacero ľudových pomenovaní, ako napríklad babka, koźlak, brzeziak či podbrzeźniak, ktoré priamo odkazujú na jej symbiózu s brezou.
V etnomykologických výskumoch sa zdôrazňuje silné postavenie kozákov v zberačskej kultúre strednej a východnej Európy. Tieto záznamy však zostávajú opisom širšej skupiny: v povedomí hubárov fungujú kozáky ako zberný ľudový taxón (Leccinum spp.), v rámci ktorého sa nerozlišujú jednotlivé biologické druhy s hnedými klobúkmi. Všetky tradičné predstavy, dávne zvyky zberu a názvy sa preto v praxi vzťahujú na celú skupinu kozákov viazaných na brezy, a nie výlučne na úzko chápaný druh Leccinum scabrum v zmysle modernej taxonómie.
Jedlosť a bezpečnosť
Kozák brezový (Leccinum scabrum) je všeobecne uznávaná jedlá huba s jemnou chuťou a decentnou lesnou vôňou. Na potravinárske účely sa zbierajú predovšetkým mladé, pevné a pružné plodnice. Zrelé a staršie exempláre rýchlo vädnú, stávajú sa špongiovitými a náchylnými na nasávanie vody a dužina v ich hlúbikoch drevnatie a stáva sa tvrdou a lykovitou, čím strácajú kulinársku využiteľnosť.
Tento druh si pred konzumáciou bezpodmienečne vyžaduje tepelnú úpravu a nesmie sa jesť za surova. Medzi základné spôsoby prípravy patrí varenie, dusenie alebo vyprážanie. Počas varenia a tepelnej úpravy dužina kozáka brezového prirodzene tmavne a nadobúda sivasté až tmavohnedé sfarbenie, čo je typická vlastnosť tejto huby. Na kulinárske účely by sa mali používať výlučne zdravé, čerstvé a nepoškodené exempláre, pričom prezreté, nadmerne rozmočené plodnice alebo plodnice vykazujúce stopy po požere hmyzom je potrebné vyradiť.
Biotop a výskyt
Kozák brezový je mykorízna huba úzko viazaná na brezy (Betula spp.), najmä na brezu previsnutú a pýritú. Vyskytuje sa v listnatých a zmiešaných lesoch s výskytom tohto stromu, v mladinách, čistých brezových porastoch, ako aj na rašeliniskách, vresoviskách a vlhkých lesných čistinkách. Uprednostňuje kyslé, piesočnaté a piesočnato-hlinité substráty.
Geografický areál v určitom ponímaní zahŕňa mierne a chladné pásmo Európy, kde je tento druh bežný. V mykologickej literatúre sa poukazovalo aj na výskyt v iných oblastiach severnej pologule, no moderné molekulárne výskumy nabádajú k opatrnosti pri zovšeobecňovaní rozšírenia. V novších publikáciách sa materiál pochádzajúci z Ázie uvádza s výhradou ako Leccinum cf. scabrum z dôvodu taxonomických pochybností a potreby revízie určenia.
V podmienkach strednej Európy, vrátane Poľska, trvá obdobie tvorby plodníc od skorého leta do neskorej jesene. Podľa národných fenologických údajov sa plodnice objavujú od júna do novembra (VI–XI), v závislosti od zrážok a teploty podkladu.
Bádateľ
Jedlosť a kuchyňa
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlosť
- Jedlý — źródło oznaczenia
Źródło bez opisu bibliograficznego · Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Źródło bez opisu bibliograficznego · Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Vedecké názvy a taxonómia
- Platný vedecký názov
Leccinum scabrum
Leccinum scabrum (Bull.) Gray należy do rodziny Boletaceae w rzędzie Boletales (podklasa Agaricomycetidae, klasa Agaricomycetes, typ Basidiomycota, królestwo Fungi). Połączenie Graya zostało opublikowane w Natural Arrangement of British Plants 1:647 (1821). Bazionimem jest Boletus scaber Bull. z dzieła Herbier de la France 3, tablica 132. Rejestr Species Fungorum podaje datę 1783 [1782–83], natomiast rewizja taksonomiczna z 2005 r. wskazuje 1782 r.; rozbieżność ta pozostaje odnotowaną różnicą bibliograficzną.
Wśród historycznych ujęć i kombinacji taksonomicznych znajdują się m.in. Suillus scaber, Krombholzia scabra, Gyroporus scaber, Ceriomyces scaber, Tubiporus scaber, Krombholziella scabra oraz Trachypus scaber. W piśmiennictwie mykologicznym opisano również liczne odmiany i formy pod odrębnymi nazwiskami autorów i datami. Przynależność do dzisiejszej synonimii nie oznacza jednak tożsamego zakresu każdego dawnego ujęcia taksonomicznego.
Rozsah taxónu a obmedzenia určovania
W literaturze odnotowano angielską nazwę zwyczajową Birch Bolete (bez przypisania do konkretnego obszaru anglojęzycznego). Niemiecka nazwa Gemeiner Birkenpilz nie ma bezpośredniego potwierdzenia w wykorzystanych źródłach.
Den Bakker i Noordeloos w rewizji z 2005 r. przyjęli szerokie ujęcie Leccinum scabrum, włączając do niego taksony opisywane pod nazwami roseofractum, avellaneum, rigidipes oraz subcinnamomeum. W tym ujęciu różowienie lub czerwienienie miąższu mieści się w naturalnej zmienności gatunku. Leccinum melaneum został w tej pracy potraktowany jako odrębny takson, a hipoteza o jego mieszańcowym pochodzeniu pozostaje nierozstrzygnięta (czeska literatura ujmuje go jako odmianę lub osobny gatunek). Z kolei Leccinum rotundifoliae w rewizji z 2005 r. uznano za odrębny takson, podczas gdy Species Fungorum włącza tę nazwę do synonimii L. scabrum.
Takson Leccinum oxydabile jest obecnie włączany do synonimii Leccinum scabrum w bazie Species Fungorum, choć inne bazy danych i rejestry mykologiczne (takie jak Checklist, GBIF czy MycoBank) bywają przywoływane w literaturze w kontekście odmiennych przypisań taksonomicznych. Cech dawnych ujęć tego taksonu nie należy bezkrytycznie przenosić na współcześnie definiowany gatunek.
Brak sinienia miąższu nie jest cechą wystarczającą do bezwzględnego oznaczenia gatunku, gdyż nietypowe owocniki innych gatunków (np. Leccinum snellii czy L. schistophilum) mogą nie wykazywać typowej dla siebie reakcji barwnej. Oznaczenie wymaga uwzględnienia budowy mikroskopowej skórki, zarodników i kaulocystyd. Reakcje chemiczne miąższu (brak reakcji lub słabe czerwienienie z formaliną oraz próby z FeSO4) mają zmienny przebieg zależny od wieku i wilgotności owocnika, przez co nie stanowią jednoznacznych kryteriów kluczowych.
- Zakres ujęcia taksonomicznego
Leccinum scabrum (Bull.) Gray; each literature report retains its own explicitly stated source concept. Den Bakker and Noordeloos2005 pp.547–550 are the wider concept including L.roseofractum, L.avellaneum and L.rigidipes. Gargano material is SAF545. No assignment of neighbouring species descriptions or subsection Scabra general characters.
[9] [10]
Ekológia a rozšírenie
- Frekvencia výskytu
- Poľsko: Frekvencia výskytu: hojný. [10]
Laboratórna diagnostika
Dane ustrukturyzowane
Bazídiá
Kaulocystidy
Hymeniálne cystidy
- Dĺžka hymeniálnej cystidy
- Dĺžka hymeniálnej cystidy: 30–50 µm. [4]
- Tvar hymeniálnej cystidy
- Tvar hymeniálnej cystidy: vretenovitá až fľaškovitá. [4]
Tvar hymeniálnej cystidy: valcovitý. [4]
Tvar hymeniálnej cystidy: kyjakovitý. [4]
Tvar hymeniálnej cystidy: Fľaškovitá. [4] - Šírka hymeniálnej cystidy
- Šírka hymeniálnej cystidy: 5,5–7,5 µm. [4]
Pokožka klobúka
- Šírka prvkov pokožky klobúka
- Šírka prvkov pokožky klobúka: 3,5–8 µm. [4]
Šírka prvkov pokožky klobúka: 8–17 µm. [4]
Šírka prvkov pokožky klobúka: 7,5–16 µm. [4] - Inkrustácia hýf pokožky
- Inkrustácia hýf pokožky: prítomný. [4]
- Farba pigmentu pokožky
- Farba pigmentu pokožky: hnedý. [4]
- Stavba pokožky klobúka
- Stavba pokožky klobúka: kutis. [4]
- Tvar koncovej bunky pokožky klobúka
- Tvar koncovej bunky pokožky klobúka: kužeľovitý. [4]
Výtrusy
- Obsah výtrusu
- Obsah výtrusu: s vakuolami. [8]
- Kvapky vo vnútri výtrusu
- Kvapky vo vnútri výtrusu: prítomný. [8]
- Dĺžka výtrusu
- Dĺžka výtrusu: 13–20 µm. [10]
Dĺžka výtrusu: 13,5–22 µm. [4]
Dĺžka výtrusu: 13–21 µm. [8]
Dĺžka výtrusu: 13–20 µm. [5] - Pomer dĺžky a šírky výtrusu
- Pomer dĺžky a šírky výtrusu: 2,5–3,5. [4]
- Tvar výtrusu
- Tvar výtrusu: vretenovitý. [4]
Tvar výtrusu: vretenovitý. [10]
Tvar výtrusu: pretiahnuto elipsoidný. [8]
Tvar výtrusu: takmer vretenovitý. [8] - Suprahilárna priehlbinka bazídiospóry
- Suprahilárna priehlbinka bazídiospóry: prítomný. [4]
- Hrúbka steny výtrusu
- Hrúbka steny výtrusu: tenkostenný. [8]
Materiál a metódy výskumu
Metody i zapisy źródłowe — Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki; Długość kaulocystyd; Szerokość kaulocystyd; Długość cystydy hymenialnej; Szerokość cystydy hymenialnej; Szerokość elementów skórki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [4]
Kształt kaulocystyd; Kształt cystydy hymenialnej; Inkrustacja strzępek skórki; Barwa pigmentu skórki; Organizacja skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Den Bakker & Noordeloos2005 pp.547,549–550; exact L.scabrum account, wider concept including roseofractum, avellaneum and rigidipes; not subsection introduction or L.melaneum.” [4]
Metody i zapisy źródłowe — Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.
Identyfikacja kropli: nierozstrzygnięta.
Zawartość zarodnika; Krople wewnątrz zarodnika; Kształt zarodnika; Powierzchnia zarodnika; Grubość ściany zarodnika — zapis źródłowy: „Gargano et al., DOI10.1080/21501203.2024.2342519, §§2.1–2.2,3.1; material SAF545, distinct from a general species interval.” [8]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [8]
Metody i zapisy źródłowe — Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [10]
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Snowarski, Leccinum scabrum: owocnik, zarodniki, występowanie; separate named-species account.” [10]
Metody i zapisy źródłowe — Karel Tejkal, Leccinum scabrum; do not include separately discussed melaneum or roseofractum forms.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Exact original boundaries and context are retained in original source and claims; three pileipellis element classes remain different targets. Q is source-reported, not calculated from independent interval bounds.” [5]
Overenie výskytu — rozsah a obmedzenia
Materiał: Pierwotna kolekcja autora atlasu z Kotliny Kłodzkiej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[10]Rozsah spracovania
Pred dokončením vyžaduje záznam doplnenie alebo vyrovnanie.
- Hľadanie oblastí výskytu si vyžaduje vyúčtovanie.
- Väzby predchádzajúcich zistení si vyžadujú opätovné preverenie.
- Nové zdroje si vyžadujú vyhodnotenie informácií zaznamenaných počas prehľadu.
Právny základ a rozsah hodnotenia
Predpisy pre lokalitu: Poľsko
Základ informácií o ochrane
Koźlarz babka nie jest objęty w Polsce gatunkową ochroną ścisłą ani częściową.
[6]Základ informácií o obchode
Koźlarz babka (wszystkie odmiany) figuruje w polskim wykazie grzybów dopuszczonych do obrotu i produkcji przetworów grzybowych, poz.15.
[7]Najdôležitejšie látky a ich účinok
Analizę biochemiczną wysuszonej i zmielonej próby SAF545 przeprowadziło laboratorium EcamRicert (raport 20LA09820 z 28 lipca 2020 r.) w trzech powtórzeniach technicznych, metodami analitycznymi według Baldini i in. (1996), z przelicznikiem białka N × 6,25 i oszacowaniem niepewności według UNI ISO 3534-1:2000.
Skład podstawowy i wartość energetyczna suchej zmielonej próby (wartości na 100 g):
- Sucha masa: 91,29 ± 0,38 g
- Wilgotność: 8,71 ± 0,38 g
- Białko ogólne (N × 6,25): 31,7 ± 1,3 g
- Tłuszcz ogólny: 3,64 ± 0,22 g
- Węglowodany: 31,57 ± 2,44 g
- Błonnik pokarmowy (wysokocząsteczkowy): 18,9 ± 2,0 g
- Popiół: 5,48 ± 0,30 g
- Wartość energetyczna: 324 ± 5 kcal (1361 ± 21 kJ).
Zawartość cukrów w suchej zmielonej próbie (g/100 g):
- Glukoza: 2,63 ± 0,41
- Fruktoza: 0,334 ± 0,053
- Laktoza: < 0,010
- Sacharoza: < 0,010
- Maltoza: < 0,010
- Cukry ogółem: 2,964 ± 0,413.
Zawartość witamin (%) i składników mineralnych (mg/kg) w suchej zmielonej próbie:
- Witamina D3: < 0,00002%
- Witamina B1: < 0,00001%
- Witamina B2: 0,0016 ± 0,0002%
- Witamina B3: 0,0146 ± 0,0015%
- Witamina B5: 0,0019 ± 0,0002%
- Witamina B6: < 0,00003%
- Witamina B8: < 0,00003%
- Witamina B12: < 0,000005%
- Sód (Na): 0,028 ± 0,006 mg/kg
- Potas (K): 2,25 ± 0,53 mg/kg
- Żelazo (Fe): < 0,003 mg/kg
- Wapń (Ca): < 0,025 mg/kg
- Fosfor (P): 3710,0 ± 670,0 mg/kg
- Magnez (Mg): 590,0 ± 130,0 mg/kg
- Cynk (Zn): 71,0 ± 13,0 mg/kg
- Miedź (Cu): 16,8 ± 3,2 mg/kg
- Selen (Se): 7,4 ± 1,8 mg/kg
- Mangan (Mn): 6,6 ± 1,3 mg/kg
- Nikiel (Ni): 1,01 ± 0,18 mg/kg
- Chrom (Cr): 0,84 ± 0,16 mg/kg
- Siarka całkowita (S): 8200,0 ± 1,50 mg/kg.
Profil kwasów tłuszczowych w suchej zmielonej próbie (g/100 g):
- Kwas masłowy (4:0): < 0,010
- Kwas kapronowy (6:0): < 0,010
- Kwas enantowy (7:0): < 0,010
- Kwas kaprylowy (8:0): < 0,010
- Kwas kaprynowy (10:0): < 0,010
- Kwas kaproleinowy (10:1): < 0,010
- Kwas laurynowy (12:0): < 0,010
- Kwas lauroleinowy (12:1 n-3): < 0,010
- Kwas izomirystynowy (14:0 iso): 0,0010
- Kwas mirystynowy (14:0): 0,0073 ± 0,0017
- 14:1 (suma): < 0,0010
- Kwas pentadekanowy (15:0): 0,0094 ± 0,0021
- 15:1 (suma): 0,0093 ± 0,0021
- Kwas sarcinowy (15:0 ante-iso): < 0,0010
- Kwas izopalmitynowy (16:0 iso): < 0,0010
- Kwas anteizopalmitynowy (16:0 ante-iso): < 0,0010
- Kwas palmitynowy (16:0): 0,372 ± 0,056
- 17:0 ante-iso: 0,0088 ± 0,0020
- Kwas margarynowy (17:0): 0,00366 ± 0,00100
- Kwas margarynowy (17:0 iso): < 0,0010
- 17:1 (suma): 0,0098 ± 0,0020
- Kwas palmitooleinowy (16:1 suma): 0,0224 ± 0,0048
- Kwas izostearynowy (18:0 iso): 0,0348 ± 0,0074
- Kwas anteizostearynowy (c-18:0 ante-iso): < 0,0010
- Kwas stearynowy (18:0): 0,075 ± 0,016
- Kwas oleinowy (18:1 suma): 1,05 ± 0,13
- 19:0: < 0,0010
- 19:0 ante-iso: < 0,0010
- 19:1 (suma): < 0,0010
- Kwas arachidowy (20:0): 0,0055 ± 0,0013
- Kwas izoarachidowy (20:0 iso): < 0,0010
- Kwas α-linolenowy (18:3 suma): 0,0085 ± 0,0017
- Kwas gadoleinowy (20:1 suma): 0,0145 ± 0,0031
- Sprzężony kwas linolowy (suma 18:2 CLA): < 0,0010
- Kwas heneikozanowy (21:0): < 0,0010
- Kwas stearydonowy (18:4 n-3): 0,0146 ± 0,0031
- Kwas behenowy (22:0): 0,0042 ± 0,0011
- 22:1: 0,00206 ± 0,00077
- Kwas lignocerynowy (24:0): 0,00231 ± 0,00080
- Wielonienasycone kwasy tłuszczowe >C20: 0,00183 ± 0,00074
- Kwasy tłuszczowe nasycone (SFA): 0,523 ± 0,059
- Kwasy tłuszczowe jednonienasycone (MUFA): 1,11 ± 0,12
- Kwasy tłuszczowe wielonienasycone (PUFA): 1,98 ± 0,23
- Stosunek kwasów PUFA/MUFA: 1,78 ± 0,29
- Stosunek kwasów PUFA/SFA: 3,79 ± 0,62.
Zawartość wolnych aminokwasów i związków pokrewnych w suchej zmielonej próbie (g/100 g):
- Kwas asparaginowy: 0,1124 ± 0,0082
- Kwas glutaminowy: 0,4318 ± 0,0313
- Alanina: 1,0600 ± 0,0769
- Arginina: 0,4556 ± 0,0331
- Asparagina: 0,1575 ± 0,0114
- Cystyna: < 0,0100
- Prolina: 0,1005 ± 0,0073
- Fenyloalanina: 0,0311 ± 0,0024
- Glicyna: 0,2679 ± 0,0194
- Glutamina: 0,9199 ± 0,0667
- Izoleucyna: 0,0222 ± 0,0017
- Histydyna: 0,1353 ± 0,0098
- Leucyna: 0,0300 ± 0,0023
- Lizyna: 0,2170 ± 0,0158
- Metionina: < 0,0100
- Ornityna: 0,2085 ± 0,0151
- Seryna: 0,3202 ± 0,0232
- Tyrozyna: 0,0538 ± 0,0040
- Treonina: 0,2762 ± 0,0200
- Walina: 0,1220 ± 0,0089
- Kwas γ-aminomasłowy (GABA): 0,3900 ± 0,0283
- Kwas α-aminomasłowy: < 0,0010
- Wolne aminokwasy ogółem: 5,31 ± 0,13.
W profilu lipidowym zmielonej próby wielonienasycone kwasy tłuszczowe (PUFA) stanowią 1,98 ± 0,23 g/100 g, jednonienasycone (MUFA) 1,11 ± 0,12 g/100 g, a nasycone (SFA) 0,523 ± 0,059 g/100 g, przy proporcjach PUFA/MUFA wynoszącej 1,78 ± 0,29 oraz PUFA/SFA równej 3,79 ± 0,62. Pula wolnych aminokwasów wynosi 5,31 ± 0,13 g/100 g, z istotnym udziałem alaniny, glutaminy oraz kwasu γ-aminomasłowego (GABA, 0,3900 ± 0,0283 g/100 g).
Dane analityczne badanej próby wykazują następujące poziomy wybranych mikroskładników: witamina D3 poniżej 0,00002%, żelazo poniżej 0,003 mg/kg, wapń poniżej 0,025 mg/kg, sód 0,028 ± 0,006 mg/kg, a potas 2,25 ± 0,53 mg/kg suchej masy, przy wyższych poziomach fosforu (3710,0 ± 670,0 mg/kg) i siarki całkowitej (8200,0 ± 1,50 mg/kg).
Średnice stref zahamowania wzrostu w próbie krążkowej wyniosły:
- Listeria monocytogenes ATCC 19114: MAE: 13,5 ± 0,2 mm; UAE: 12,0 ± 0,1 mm (różnica istotna statystycznie, P < 0,01)
- Staphylococcus aureus subsp. aureus ATCC 33862: MAE: 12,5 ± 0,1 mm; UAE: 12,5 ± 0,1 mm
- Salmonella enterica subsp. enterica ATCC 13076: MAE: 11,5 ± 0,2 mm; UAE: 11,0 ± 0,1 mm
- Escherichia coli ATCC 25922: MAE: 10,5 ± 0,2 mm; UAE: 10,0 ± 0,2 mm.
Stopień zahamowania wzrostu bakterii w teście mikrorozcieńczeń (kategorie autorów: brak: −; niskie ≤35%: +; umiarkowane >35–70%: ++; wysokie >70%: +++):
100 mg/mL
- L. monocytogenes: MAE 99,80% (+++); UAE 94,90% (+++)
- S. aureus: MAE 99,75% (+++); UAE 95,38% (+++)
- S. enterica: MAE 99,76% (+++); UAE 99,79% (+++)
- E. coli: MAE 99,83% (+++); UAE 97,97% (+++)
50 mg/mL
- L. monocytogenes: MAE 92,92% (+++); UAE 79,58% (+++)
- S. aureus: MAE 61,93% (++); UAE 66,43% (++)
- S. enterica: MAE 81,77% (+++); UAE 89,94% (+++)
- E. coli: MAE 93,40% (+++); UAE 80,07% (+++)
25 mg/mL
- L. monocytogenes: MAE 74,11% (+++); UAE 57,60% (++)
- S. aureus: MAE 40,82% (++); UAE 46,76% (++)
- S. enterica: MAE 46,65% (++); UAE 67,62% (++)
- E. coli: MAE 75,51% (+++); UAE 66,67% (++)
12,5 mg/mL
- L. monocytogenes: MAE 39,15% (++); UAE 31,08% (+)
- S. aureus: MAE 25,04% (+); UAE 20,75% (+)
- S. enterica: MAE 55,39% (++); UAE 43,44% (++)
- E. coli: MAE 51,32% (++); UAE 51,94% (++)
6,25 mg/mL
- L. monocytogenes: MAE 30,12% (+); UAE 18,33% (+)
- S. aureus: MAE 24,32% (+); UAE 22,30% (+)
- S. enterica: MAE 43,22% (++); UAE 42,82% (++)
- E. coli: MAE 46,73% (++); UAE 39,26% (++)
3,125 mg/mL
- L. monocytogenes: MAE 23,97% (+); UAE 15,58% (+)
- S. aureus: MAE 19,03% (+); UAE 16,33% (+)
- S. enterica: MAE 37,26% (++); UAE 28,90% (+)
- E. coli: MAE 27,61% (+); UAE 19,13% (+)
1,5625 mg/mL
- L. monocytogenes: MAE 17,50% (+); UAE 12,13% (+)
- S. aureus: MAE 6,38% (+); UAE 10,63% (+)
- S. enterica: MAE 18,68% (+); UAE 20,70% (+)
- E. coli: MAE 23,18% (+); UAE 20,84% (+)
0,78125 mg/mL
- L. monocytogenes: MAE 14,19% (+); UAE 11,59% (+)
- S. aureus: MAE 4,13% (+); UAE 10,84% (+)
- S. enterica: MAE 5,07% (+); UAE 7,10% (+)
- E. coli: MAE 0,00% (−); UAE 10,52% (+).
W teście mikrorozcieńczeń oba ekstrakty w stężeniu 100 mg/mL silnie hamowały wzrost wszystkich czterech badanych szczepów (>70%). Przy stężeniu 50 mg/mL ekstrakt UAE hamował wzrost E. coli na wysokim poziomie 80,07%. Przy stężeniu 6,25 mg/mL ekstrakt UAE hamował wzrost S. enterica na poziomie umiarkowanym (42,82%). Przy najniższym testowanym stężeniu 0,78125 mg/mL ekstrakt MAE nie wykazywał hamowania wzrostu E. coli (0,00%), podczas gdy pozostałe warianty wykazywały niskie wartości hamowania.
Badania aktywności biologicznej ekstraktów wodnych opublikowano w czasopiśmie Mycology (online 2024, wydanie drukowane 16(1), 2025, s. 402–412; erratum z 2025 r. pod DOI 10.1080/21501203.2025.2461915). Przedstawione wyniki mają charakter wyłącznie laboratoryjnych testów in vitro.
Biotop a výskyt
Biotop, oblasť a ročné obdobie
Koźlarz babka tworzy ektomikoryzę wyłącznie z brzozami (Betula). Wyrasta na ziemi, pojedynczo, w małych grupach lub gromadnie, w lasach, zaroślach, a także poza lasem – w parkach, ogrodach i na trawnikach pod brzozami. Preferuje gleby piaszczyste, suche do umiarkowanie wilgotnych, o odczynie słabo kwaśnym, pojawiając się m.in. w ubogich murawach z kostrzewą czerwoną (Festuca rubra) i śmiałkiem pogniecionym (Deschampsia flexuosa).
W Czechach koźlarz babka jest bardzo pospolity i występuje od nizin po tereny górskie w okresie od czerwca do listopada (udokumentowane znaleziska pochodzą m.in. z kraju środkowoczeskiego – 6 X 2024, pilzneńskiego – 18 VIII 2023, zlińskiego – 28 IX 2018 i Wysoczyzny – 14 IX 2017).
Gatunek jest szeroko rozprzestrzeniony w Europie (bardzo pospolity m.in. w Holandii) i wykazuje prawdopodobny zasięg okołobiegunowy; materiały zielnikowe pochodzą m.in. z Holandii, Finlandii oraz prowincji Ontario w Kanadzie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Zdroje |
|---|---|---|---|
| Poľsko | Kladská kotlina | VI–XI |
|
Materiály
Herbárové položky
- 44
Holandsko; Drenthe, Emmen; 1999-10-02; H.C. den Bakker
[2]- 50
Holandsko; Drenthe, Nieuw Amsterdam; 1999-10-04; H.C. den Bakker
[2]- 54
Holandsko; Drenthe, Borger, vicinity of cottage park Land van Bartje; 1999-10-05; H.C. den Bakker
[2]- 01-009
Holandsko; Drenthe, Gieten, Boekweitveentje; 2001; R. Enzlin
[2]- 48
Holandsko; Drenthe, Hoogeveen; leg.B.de Vries; 1999-10-03; H.C. den Bakker
[2]- 62
Holandsko; Noord-Holland, Amsterdamse Waterleiding Duinen, Eiland van Rolvers; 1999-10-23; H.C. den Bakker
[2]- 58
Holandsko; Zuid-Holland, Wassenaar, Meijendel; 1999-10-17; H.C. den Bakker
[2]- 42
Holandsko; Zuid-Holland, Voorschoten; C.Bas; 1999-09-30; H.C. den Bakker
[2]- 124
Holandsko; Utrecht, Zeist, Soesterberg; 2000-10-06; H.C. den Bakker
[2]- 1+2 (L), designated epitype
Francúzsko; Guyancourt, along N12, vicinity of Versailles; 2001-09-27; J. van Brummelen
[2]- Zber
Francúzsko; Orne, Foret de Belleme; 2001-09-28; Van Brummelen
[2]- 95
Nórsko; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 91
Nórsko; Sogn og Fjordane, Sogndalsfjøra; 2000-09-08; H.C. den Bakker
[2]- 87
Nórsko; Sogn og Fjordane, Sogndalsfjøra; IX 2000; H.C. den Bakker
[2]- 239
Spojené kráľovstvo; Scotland, Inverness-shire, Aberarder Forest; 2001-09-13; H.C. den Bakker
[2]- 231
Spojené kráľovstvo; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 237
Spojené kráľovstvo; Scotland, Inverness-shire, Insh Marshes; 2001-09-12; H.C. den Bakker
[2]- 4399 (E), holotype L.rigidipes
Spojené kráľovstvo; Scotland, Inverness-shire, Abernethy Forest; 1972-08-31; P. Orton
[2]- 4944 (E), holotype L.roseofractum
Spojené kráľovstvo; Scotland, Ross & Cromarty, Loch Maree; R. Watling
[2]- 22
Švédsko; Jämtland, Borgsjö; 1999-08-24; H.C. den Bakker
[2]- 80
Švédsko; Åre; 2000-09-04; H.C. den Bakker
[2]- 2003076
Spojené kráľovstvo; Wales, South Glamorgan, Merthyr-mawr sand dunes; A. Hills
[2]- SAF545
Poľsko; Białowieża forest, Podlaskie; literal published location, not geocoded; summer; exact date/year unreported
[2]
Zdroje
- leccinum_scabrum.source-collections
- src-bakker 2005
- src-cms-scabrum
- src-eli-protection-2014
- src-eli-trade-2026
- src-gargano 2024
- src-gbif-leccinum_scabrum
- src-snowarski-scabrum