
Jadalny

Wymaga obróbki

Na surowo trujący

Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.


Muchomor bocznotrzonowy (Amanita submembranacea) to rzadziej spotykany grzyb naziemny z sekcji Vaginatae, związany głównie z ekosystemami górskimi i podgórskimi. Cechuje się szarooliwkowym lub brązowawym kapeluszem z fragmentami osłony oraz brakiem pierścienia na trzonie.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
Kapelusz
- Kształt
- Kapelusz może mieć kształt dzwonkowaty, wypukły lub płaski; u młodych owocników — jajowaty.
- Ukształtowanie powierzchni
- Powierzchnia kapelusza jest gładka.
- Połysk powierzchni
- Powierzchnia kapelusza jest lśniąca.
- Lepkość i śluzowatość
- Powierzchnia kapelusza jest nieco lepka.
- Kolor
- Kapelusz może być brązowooliwkowy, oliwkowobrązowy lub żółtobrązowy.
- Ukształtowanie powierzchni brzegu
- Brzeg kapelusza jest bruzdkowany.
- Średnica
- Kapelusz może mieć średnicę od 50 do 100 milimetrów.
- Środek
- Na środku kapelusza występuje mały, płaski garbek.
- Zasięg rowkowania brzegu kapelusza
- Rowkowanie brzegu kapelusza może sięgać od jednej czwartej do połowy promienia kapelusza.
- Obecność resztek osłony na kapeluszu
- Stwierdzono obecność lub brak resztek osłony na kapeluszu.
- Barwa resztek osłony na kapeluszu
- Resztki osłony na kapeluszu są szarawe.
- Postać resztek osłony na kapeluszu
- Resztki osłony na kapeluszu mają postać łatek.
Spód kapelusza
- Typ
- Hymenofor ma budowę blaszkową.
Blaszki przy trzonie
- Połączenie z trzonem
- Blaszki są wolne od trzonu.
- Barwa
- Hymenofor może być biały lub kremowy.
- Ostrze
- Ostrze blaszki może być orzęsione; może być nieco kłaczkowate.
- Rozstaw
- Blaszki mogą być gęste lub nie bardzo gęste.
- Szerokość blaszek
- Blaszki są szerokie.
Trzon i podstawa
- Położenie
- Trzon ma położenie centralne.
- Kształt
- Trzon jest walcowaty.
- Podstawa
- Podstawa trzonu jest nieco bulwiasta.
- Kolor
- Trzon może być białawy lub jasnokremowy.
Dół trzonu może być brązowooliwkowy. - Pokrycie powierzchni
- Powierzchnia trzonu jest łuskowata.
- Wnętrze
- Trzon jest pusty.
- Konsystencja
- Trzon jest kruchy.
- Długość
- Trzon może mieć długość od 70 do 150 milimetrów.
- Grubość
- Trzon może mieć grubość od 7 do 15 milimetrów.
- Pochwa
- Stwierdzono obecność pochwy.
Pierścień
- Obecność
- Pierścień nie występuje u tego gatunku.
Osłona u podstawy
- Budowa
- Osłona u podstawy trzonu może być workowata.
W dolnej części trzonu: resztki osłony całkowitej tworzą pierścieniowate pasma.
- Odporność pochwy i osłony u podstawy na uszkodzenie
- Osłona u podstawy trzonu jest łatwa do uszkodzenia.
- Odporność miąższu trzonu na przełamanie lub rozerwanie
- Miąższ trzonu może być łatwy do złamania.
- Krępość trzonu
- Trzon jest smukły.
- Barwa pochwy i osłony u podstawy trzonu
- Osłona u podstawy trzonu jest szara.
Miąższ
- Barwa
- Miąższ jest biały.
- Zapach
- Zapach miąższu jest słaby; może być niewyczuwalny.
- Nuta smakowa
- Miąższ ma nutę smakową orzechową.
- Smak
- Smak miąższu jest łagodny.
- Obecność wyczuwalnego smaku miąższu
- Smak miąższu jest niewyczuwalny.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach liściastych, w lasach iglastych, w lasach mieszanych lub w zaroślach.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba.
- Sposób wyrastania
- Owocniki mogą wyrastać pojedynczo lub w rozproszonych grupach.
- Częstość
- Gatunek jest rzadki.
- Owocnikowanie
- Owocniki mogą pojawiać się od lipca do października.
- Obszar występowania
- Potwierdzono występowanie w Polsce.
Jadalność i kuchnia
- Jadalność
- Jadalny
- Wymagana obróbka
- Wymaga obróbki
- Spożycie na surowo
- Na surowo trujący
Prawo
- Ochrona
- W Polsce nie podlega ochronie gatunkowej.
- Handel
- W Polsce nie jest dopuszczony do obrotu handlowego ani do produkcji przetworów grzybowych.
Z czym można pomylić
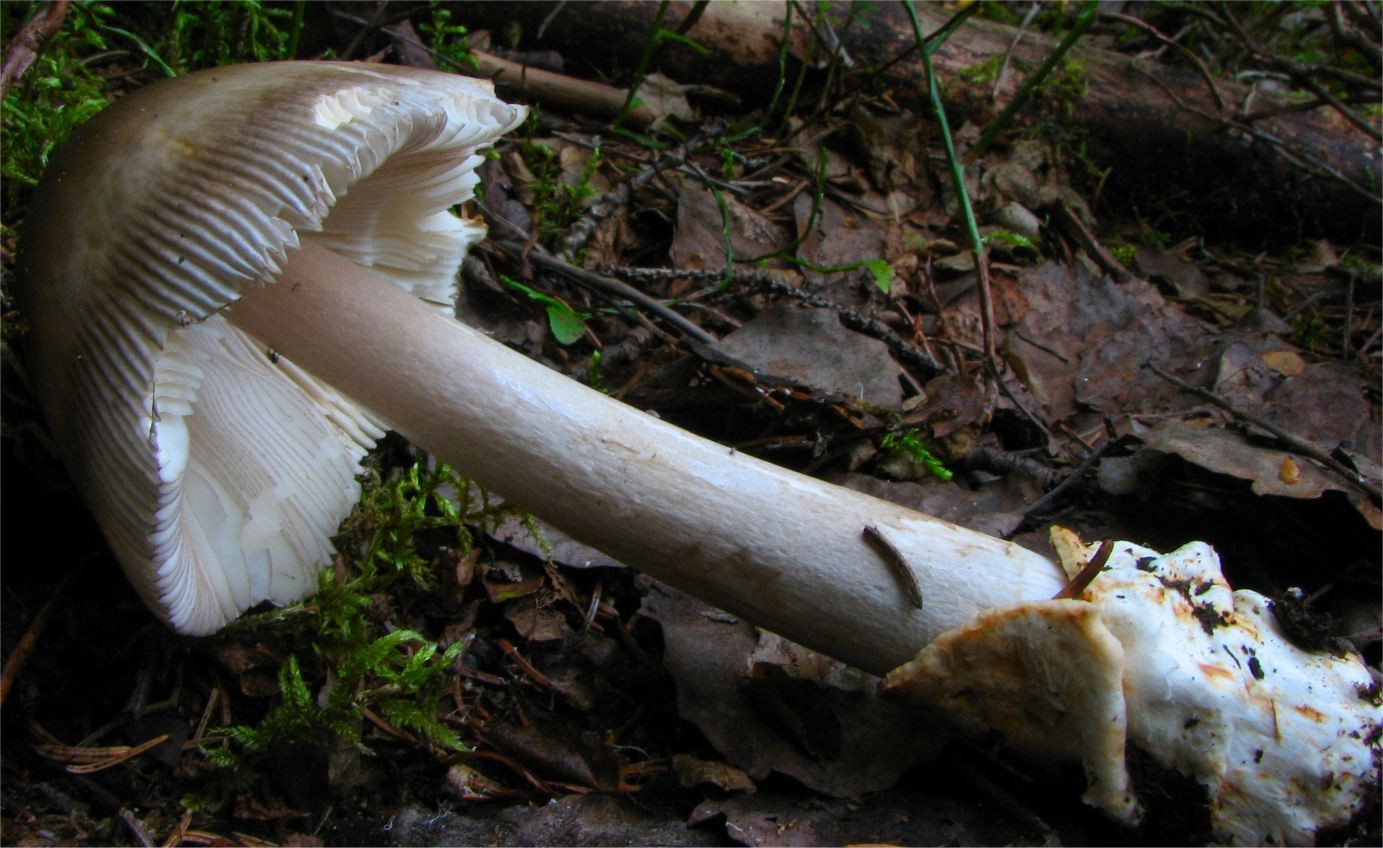
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Źródło zdjęcia · CC BY-SA 3.0Amanita battarrae
Najważniejsze różnice
Muchomor brązowooliwkowy (Amanita submembranacea) tworzy kapelusze częściej pokryte dużymi płatami osłony, a jego pochwa u podstawy trzonu wyraźnie szarzeje od strony wewnętrznej.
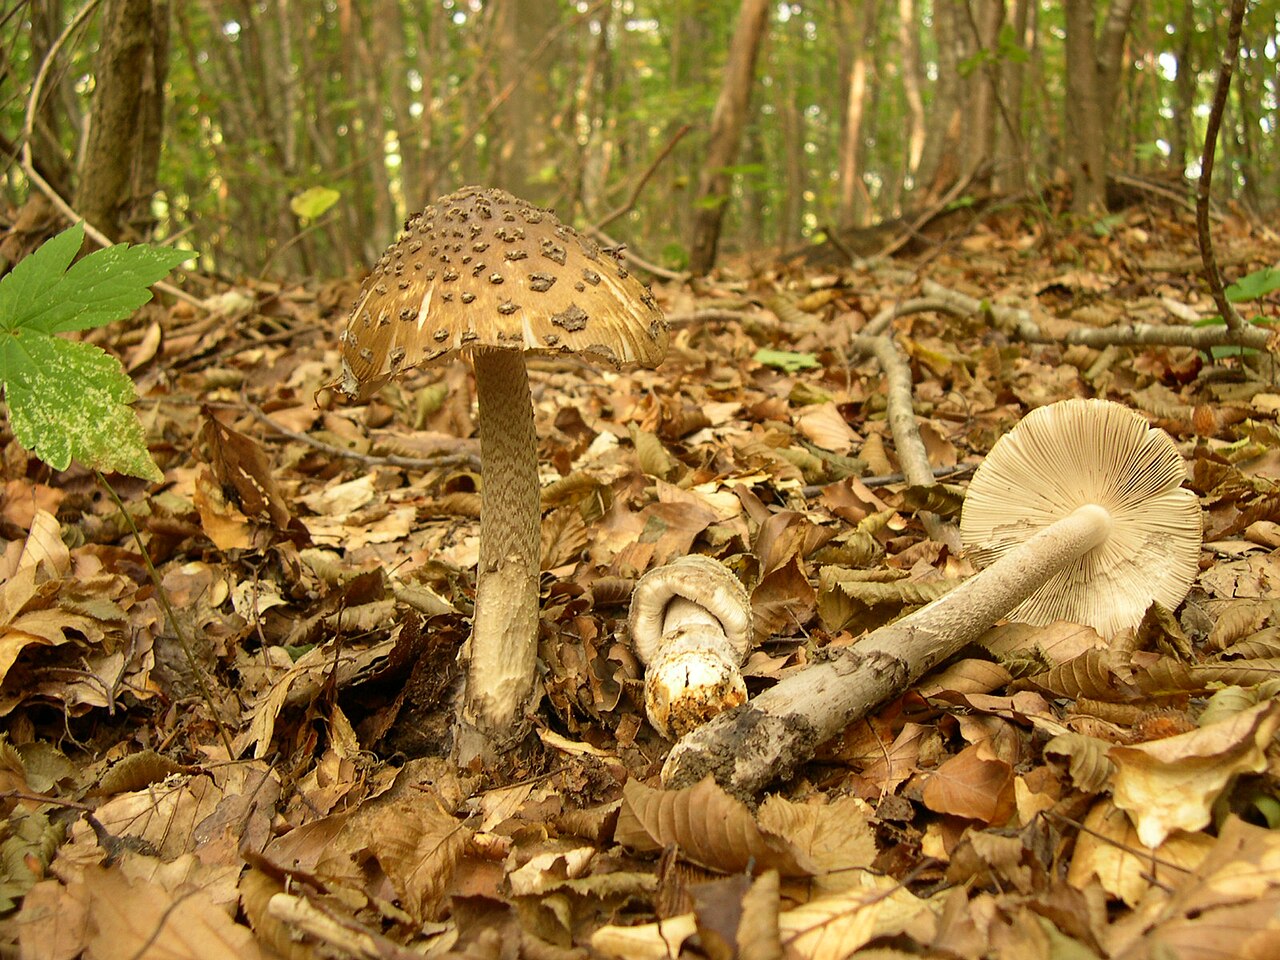
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Źródło zdjęcia · CC BY-SA 3.0Muchomor złotawy
Amanita ceciliae
Najważniejsze różnice
Muchomor brązowooliwkowy (Amanita submembranacea) różni się obecnością dużych fragmentów osłony na kapeluszu oraz szarzejącą od wewnątrz pochwą, rosnąc głównie w lasach górskich na glebach kwaśnych.
FAQ
W jakich rejonach geograficznych występuje ten gatunek?
Występuje głównie w chłodniejszych obszarach Europy oraz w pasmach górskich, takich jak Alpy, Sudety i Karpaty.
Z jakimi drzewami wchodzi w mikoryzę?
Rośnie w mikoryzie przede wszystkim ze świerkiem pospolitym, jodłą i modrzewiem, rzadziej z bukiem.
Czy można spożywać ten grzyb na surowo?
Nie, surowy wywołuje zatrucia pokarmowe i niszczy krwinki; jadalny jest wyłącznie po dokładnym obgotowaniu.
Kiedy przypada szczyt sezonu owocnikowania?
Owocniki pojawiają się od końca lipca do początku października, z kulminacją w sierpniu i wrześniu.
Jaki smak charakteryzuje ten gatunek?
Miąższ ma smak neutralny, słabo wyczuwalny, łagodny, o bardzo miękkiej i kruchej konsystencji.
Czy grzyb ten posiada pierścień?
Nie ma pierścienia na trzonie; należy do bezpierścieniowych przedstawicieli rodzaju Amanita.
Jakie typy siedlisk preferuje?
Zasiedla wilgotne, zacienione bory iglaste, stoki górskie oraz obrzeża torfowisk na kwaśnej glebie.
Czy jest popularnym grzybem jadalnym w Europie?
Nie, ze względu na rzadkość i małą wyrazistość smaku jest bardzo rzadko zbierany do celów spożywczych.
Jakie zastosowanie pozakulinarne miał w rejonach górskich?
Stosowano go dawniej do barwienia wełny na kolory ziemiste oraz do dymnego odstraszania owadów leśnych.
Jakie przygotowanie termiczne jest wymagane przed spożyciem?
Wymaga długiego gotowania, a wywar z pierwszego etapu należy wylać, aby usunąć szkodliwe substancje.
Miłośnik
Nazwy i historia
- Obowiązująca nazwa krajowa
- muchomor brązowooliwkowy
- Obowiązująca nazwa taksonomiczna
- Amanita submembranacea (Bon) Gröger
- Pozostałe nazwy
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników ma barwę białą.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik może mieć kształt kulisty lub niemal kulisty. Zarodnik rzadko może mieć kształt niemal równowymiarowy.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 9,5 do 13,0 mikrometra i szerokość od 9,0 do 12,0 mikrometra.
- Wymiary
- Rzadko występująca forma zarodnika (kształt niemal równowymiarowy) może mieć długość od 10 do 15 mikrometrów i szerokość od 9 do 13 mikrometrów.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Doświadczenie z fenolem
- Materiał
- Miąższ owocnika
- Odczynnik
- fenol
- Wykonanie
- W opisanej próbie zastosowano fenol do wskazanego materiału.
- Warunki i braki źródłowe
W źródle nie podano: przygotowania próbki, stężenia fenolu, ilości odczynnika, temperatury, czasu odczytu, szczegółowego sposobu naniesienia odczynnika.
Obserwacja / wynik
- Wynik źródłowy
- W miąższu po zastosowaniu fenolu uzyskano brudną czerwonobrunatną barwę.
- Wynik źródłowy
- W miąższu po zastosowaniu fenolu uzyskano winnoróżową barwę.
Ekologia i rozmieszczenie
- Odczyn gleby
- Preferuje gleby kwaśne.
- Żyzność gleby
- Preferuje gleby żyzne.
- Drzewa liściaste w otoczeniu
- W otoczeniu rosną dęby, buki, brzoza, olsze, lipa i graby.
- Drzewa iglaste w otoczeniu
- W otoczeniu rosną świerki i jodły.
- Krzewy w otoczeniu
- W otoczeniu rośnie kosodrzewina.
- Partnerzy mikoryzowi
- Mikoryzę z tym grzybem tworzą jodły.
Mikoryzę z tym grzybem tworzy brzoza.
Mikoryzę z tym grzybem tworzy modrzew.
Mikoryzę z tym grzybem tworzą świerki. - Sposób odżywiania
- Gatunek ma sposób odżywiania ektomikoryzowy.
Zastosowania pozakulinarne
Z uwagi na górski charakter oraz ograniczoną dostępność, gatunek ten miał nieliczne udokumentowane zastosowania użytkowe w dawnej gospodarce wiejskiej. W tradycyjnym rzemiośle niektórych wiosek alpejskich ciemne, oliwkowobrązowe barwniki pozyskiwane ze starych kapeluszy wykorzystywano w procesie barwienia grubych tkanin wełnianych na barwy ziemiste, szarozielone i brunatne.
W lokalnych praktykach dawnych społeczności pasterskich wysuszone owocniki bywały niekiedy stosowane jako element dymnych mieszanek odstraszających uciążliwe owady leśne podczas wypasu owiec w wilgotnych dolinach reglowych. Popiół ze spalonych starych grzybów w tradycyjnych wierzeniach górali alpejskich bywał sporadycznie rozsypywany wokół szałasów pasterskich w celach apotropeicznych, mających chronić stado przed drapieżnikami.
Historia i kultura
Ze względu na specyficzny, ograniczony do wyższych położeń zasięg, gatunek ten nie odegrał znaczącej roli w ogólnoeuropejskim folklorze nizinnym, lecz zaznaczył swoją obecność w tradycjach społeczności góralskich i alpejskich. Pasterze w Alpach oraz Karpatach znali go jako jednego z charakterystycznych mieszkańców regla górnego i borów świerkowych.
W literaturze mykologicznej XIX i XX wieku był obiektem ożywionych dyskusji systematycznych dotyczących zmienności sekcji Vaginatae, stanowiąc klasyczny przykład przystosowania muchomorów do surowych warunków klimatycznych strefy alpejskiej i subalpejskiej. W przekazach ludowych z rejonów tatrzańskich ciemne, oliwkowobrązowe muchomory bez pierścienia wiązano z dawnymi wierzeniami o ziołach i grzybach rosnących w miejscach niedostępnych, chronionych przez duchy górskie.
Jadalność i bezpieczeństwo
Mimo że gatunek ten jest klasyfikowany jako warunkowo jadalny po dokładnej obróbce termicznej, jego spożywanie wiąże się ze znacznym ryzykiem pomyłki i nie jest powszechnie praktykowane. W stanie surowym zawiera związki termolabilne o działaniu hemolitycznym oraz drażniącym układ pokarmowy, powodujące zatrucia żołądkowo-jelitowe. Neutralizacja tych substancji wymaga intensywnego i długotrwałego gotowania połączonego z odlaniem wywaru.
Miąższ ma neutralny lub lekko grzybowy, mało wyrazisty smak i jest bardzo delikatny oraz kruchy. Ze względu na rzadkość występowania, specyficzne górskie siedliska oraz niewielkie walory kulinarne nie cieszy się zainteresowaniem kulinarnym w większości krajów europejskich i jest zbierany jedynie sporadycznie przez wąskie grono lokalnych znawców.
Siedlisko i występowanie
Muchomor bocznotrzonowy występuje głównie w chłodniejszych rejonach Europy Środkowej, Północnej oraz w pasmach górskich, takich jak Alpy, Karpaty czy Sudety. Jest gatunkiem typowo górskim i podgórskim, preferującym wyższe położenia n.p.m. Rośnie w lasach iglastych oraz mieszanych, wchodząc w mikoryzę przede wszystkim ze świerkiem pospolitym, jodłą pospolitą oraz modrzewiem europejskim, a rzadziej z bukiem zwyczajnym. Siedliskiem są najczęściej zacienione stoki, wilgotne wąwozy i skraje torfowisk górskich na kwaśnym, ubogim podłożu z grubą warstwą ściółki iglastej.
Sezon wegetacyjny tego gatunku jest ściśle powiązany z klimatem górskim. Owocniki pojawiają się zazwyczaj od końca lipca do początku października. Najobfitsze owocnikowanie przypada na sierpień i wrzesień, po okresach obfitych letnich deszczy. W wyższych partiach gór sezon kończy się bardzo wcześnie z powodu pierwszych przymrozków.
Źródła
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Wymagana obróbka
- Wymaga obróbki
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: źródłowy warunek cuisson; brak swoistego zwalidowanego protokołu czasu i temperatury
- Jadalność
- Jadalny — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; karta dydaktyczna, nie próba bezpieczeństwa
- Spożycie na surowo
- Trujący
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: source author links absence of cooking to harmful haemolytic effects. Does not establish a tested safe preparation protocol.
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Amanita submembranacea (Bon) Gröger
Amanita submembranacea (Bon) Gröger należy do rodziny muchomorowatych (Amanitaceae) i sekcji Vaginatae. Obecną kombinację opublikowano w 1979 roku w oparciu o bazonim Amanitopsis submembranacea Bon z 1975 roku.
W historycznym piśmiennictwie mykologicznym z taksonem tym wiązana bywa niepublikowana nazwa Amanita subalpina M. M. Moser ined.
Zakres taksonu i ograniczenia oznaczania
Współczesna rewizja europejskiej sekcji Vaginatae potwierdza odrębność gatunkową A. submembranacea w oparciu o zestawienie cech mikroskopowych pochwy z analizą sekwencji nrDNA ITS, nrDNA LSU, RPB1 i TEF1-α.
Ekologia i rozmieszczenie
- Częstość — ocena i zakres źródła
- Polska — dane ogólne: Gatunek jest rzadki. [26]
Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
- Kształt podstawki
- Podstawka jest maczugowata. [23]
Pozostałe cechy laboratoryjne
- Wierzchołek komórek ostrza blaszki
- Wierzchołek komórki ostrza blaszki jest główkowaty. [23]
- Przewężenia komórek ostrza blaszki
- Komórki ostrza blaszki mają przewężenia. [23]
- Przebieg komórek ostrza blaszki
- Komórki ostrza blaszki mają kręty przebieg. [23]
- Długość komórki ostrza blaszki
- Szeroko maczugowate komórki ostrza blaszki mogą mieć długość od 20 do 40 mikrometrów. [35]
Komórka ostrza blaszki może mieć długość od 20 do 30 mikrometrów. [23] - Członowanie komórek ostrza blaszki
- Komórki ostrza blaszki są członowane. [23]
- Kształt innych komórek ostrza blaszki
- Komórka ostrza blaszki może mieć kształt szeroko maczugowaty, przypominający człon opuncji lub młotkowaty. [35] [23]
Część komórek ostrza blaszki może mieć kształt kulisto-trzonkowaty. [23] - Regularność grupy komórek ostrza blaszki
- W opisanej grupie komórki ostrza blaszki często mają nieregularny kształt. [23]
- Szerokość komórki ostrza blaszki
- Szeroko maczugowate komórki ostrza blaszki mogą mieć szerokość od 16 do 30 mikrometrów. [35]
Komórka ostrza blaszki może mieć szerokość od 10 do 15 mikrometrów. [23] - Zżelatynizowanie podhymenium
- Przy ostrzu blaszki: podhymenium czasami jest nieznacznie zżelatynizowane. [23]
- Budowa subhymenium
- Podhymenium może być kręte. [23]
W strefie podstawnikotwórczej: podhymenium może być członowane lub subkomórkowe. [23] - Typy komórek w osłonie całkowitej
- Część komórek osłony całkowitej stanowią sferocysty. [23]
W osłonie całkowitej mogą występować strzępki nitkowate. [23]
U podstawy trzonu, w zewnętrznej warstwie osłony: w osłonie całkowitej przeważają strzępki nitkowate. [31]
U podstawy trzonu: udział sferocyst rośnie ku wnętrzu osłony całkowitej. [31] - Średnica kulistych komórek osłony całkowitej
- Średnica sferocysty osłony całkowitej może wynosić od 20 do 70 mikrometrów. [23]
- Kształt komórki osłony całkowitej
- Komórka osłony ma kształt kulisty. [23]
- Szerokość strzępki osłony całkowitej
- Strzępka osłony całkowitej może mieć szerokość od 3 do 15 mikrometrów. [23]
Skórka kapelusza
- Układ strzępek skórki
- Strzępki skórki kapelusza są równoległe [29], a w warstwie hypokutis: są ułożone mniej lub bardziej równolegle. [23]
- Kształt elementów skórki kapelusza
- Elementy skórki kapelusza mają kształt walcowaty. [35]
- Szerokość elementów skórki
- Szerokość elementów skórki może wynosić od 3 do 6 mikrometrów [29], a wolne zakończenia strzępek epikutis, bez utożsamienia z całą grubością skórki: Szerokość elementów skórki kapelusza może wynosić od 3 do 6 mikrometrów [23], a strzępki hypokutis, odrębne od wolnych końców epikutis: Szerokość elementów skórki kapelusza może wynosić od 10 do 15 mikrometrów. [23]
- Zmienność zżelatynizowania skórki kapelusza
- Zżelatynizowanie skórki kapelusza jest zmienne. [35]
W warstwie epikutis: zżelatynizowanie skórki kapelusza jest zmienne. [23] - Osadzenie strzępek skórki w substancji żelowej
- W warstwie epikutis: strzępki skórki kapelusza są zżelatynizowane. Stopień zżelatynizowania jest zmienny. [23]
Zarodniki
- Barwa zarodnika w mikroskopie
- Zarodnik w obrazie mikroskopowym może być hialinowy, bezbarwny i przejrzysty. [29]
Strefa endosporium zarodnika w jodzie może mieć nieznacznie żółtorudawe zabarwienie. [23] - Źródłowa ocena reakcji endosporium w jodzie
- Autor rozważa słabą pseudoamyloidalność strefy endosporium w jodzie i oznacza tę ocenę pytajnikiem. [23]
- Położenie kropli zarodnika
- Położenie kropli zarodnika jest centralne. [23]
- Krople wewnątrz zarodnika
- W zarodniku występują duże krople. [23]
- Długość zarodnika
- Zarodnik może mieć długość od 9,5 do 13,0 mikrometra. [17]
Długość rzadko występującej formy zarodnika może wynosić od 10 do 15 mikrometrów. [23] - Kształt zarodnika
- Zarodnik może mieć kształt kulisty lub niemal kulisty. [17] [35] [23]
Zarodnik rzadko może mieć kształt niemal równowymiarowy. [23]
Trama hymenoforu
Materiał i metody badań
Opis cech — źródło i zakres
Materiał: Ogólny autorski opis Lyon 1: Odeur faible, voire nulle.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Opis dydaktyczny bez numeru okazu; niewyczuwalny zapach to inny aspekt niż słabe natężenie.
[33]Materiał: Badany materiał polski w opisie Ronikier 2012, smak mild, zapach none.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Opis autora; nie instrukcja prób smakowych surowego grzyba.
[35]Próba z odczynnikiem chemicznym — materiał i ograniczenia
Materiał: Miąższ owocników w opisie Bon 1975, akapit Chair; fenol, bez podanego stężenia, temperatury i czasu odczytu.
Zakres odczytu: Udokumentowana obserwacja.
Ograniczenia: Nie dopisano chronologicznej zmiany barwy ani protokołu z innych gatunków. Oryginalne określenie barwy i własny kwalifikator pozostają oddzielne.
[23]Badanie składu i aktywności — materiał i ograniczenia
Materiał: Owocniki A. submembranacea, wewnątrzkomórkowe srebro; dokładny materiał zbiorczy opisany w abstrakcie.
Zakres odczytu: Abstrakt.
[20]Badanie cząsteczek — Borovička i in (2010)
Materiał: Kompleksy srebra i ich peptydowy ligand z owocników A. submembranacea; molekularne rozdzielenie frakcji w abstrakcie.
Zakres odczytu: Abstrakt.
[20]Wspólne ograniczenia odczytu źródła
Ograniczenia: Odczytano cały abstrakt publikacji pierwotnej przez indeks EuropePMC. Pełnego artykułu nie odczytano; brak N i szczegółów poszczególnych okazów. Zbiorczego zakresu 304–692 mg/kg dla sekcji Vaginatae nie przypisano temu gatunkowi. To nie dowód wdrożenia bioremediacji ani zastosowania leczniczego. Metody wymienione w abstrakcie: chromatografia wykluczania rozmiarowego, fluorometria grup sulfhydrylowych, RP-HPLC i ulepszona elektroforeza poliakrylamidowa. Nie uzupełniono niepodanych parametrów. Identyfikację gatunku podali autorzy (2010). Metoda identyfikacji i okaz dowodowy nie są dostępne w odczytanym abstrakcie; nie wykonano ponownego oznaczenia materiału.
[20]Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- Wyniki źródłowe — Liczba zarodników na jednej podstawce
- Liczba zarodników na jednej podstawce wynosi 4. [23] [35]
- Wyniki źródłowe — Średnica zarodnika
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [35]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [23]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [29]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [29]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [23]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [23]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [23]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [23]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [23]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [23]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [23]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [23]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [23]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [23]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [23]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [23]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [23]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [23]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [23]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [23]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [23]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [23]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [23]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [23]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [23]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [23]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [23]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [23]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [23]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [23]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [23]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [23]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [23]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [23]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [23]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [23]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [23]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [23]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [23]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [23]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [23]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [23]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [23]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [35]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [35]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [35]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [35]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [35]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [35]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [35]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [35]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [35]
Kształt zarodnika — zapis źródłowy: „globose” [35]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [35]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [31]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [31]
Nazwy i zakres taksonu
Nazwa główna: Muchomor brązowooliwkowy to nazwa zaproponowana przez Wojewodę w polskim wykazie z 2003 r., s. 50; późniejszy polski raport terenowy używa tej samej nazwy. Nie jest to nazwa ustanowiona przepisem. Atlas Ekologia.pl podaje też mglejarkę brązowooliwkową i gryzetkę brązowooliwkową; zachowano je jako nazwy alternatywne z pochodzeniem atlasowym. Nie znaleziono niezależnego potwierdzenia dawnych etykiet szaropochwowy i mglejarka szaropochwowa.
Bazonim i synonimia: Bon opisał Amanitopsis submembranacea w 1975 r., s. 176, na podstawie materiału z Francji; typ Fontanet, 17.09.1974, nr 740917. Aktualna kombinacja w rejestrze to Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum podaje też var. griseoargentata Contu 1986 jako synonim. Jest to opinia rejestru; nie badano typu tej odmiany. A. subalpina M. M. Moser ined. pozostaje nazwą historyczną niepublikowaną. Dawnej var. bispora, obecnie A. reidiana, ani porównywanej A. olivaceogrisea nie włączono do danych gatunku.
Dane molekularne: Varga i in. (2024), tabela 1, podają własny okaz DB-2018-07-31-1(AD25), Trafoi, Tyrol Południowy, Włochy, z sekwencjami PP375774, PP375269, PP358527, PP273684. Pozostałe wiersze obejmują Estonię, Niemcy, Belgię, Francję i Austrię oraz odsyłają do wcześniejszych prac. Tych wpisów nie potraktowano jako genetycznej weryfikacji polskich okazów ani własnego produktu.
[38] [26] [27] [22] [24] [30] [31] [37]Polskie stanowiska, siedlisko i sezon
Materiał zielnikowy: Ronikier opisała owocniki z masywu Sarniej Skały: KRAM F-39947 (20.06.2000), F-50021 (04.07.2000), F-54314 (03.07.2002), F-54315 (20.08.2002), F-54316 (16.08.2003), z wysokości 910–1160 m, na glebie, w buczynie, lesie jodłowo-świerkowym i świerkowym. Ryc. 9 powiązano z F-39947. Raport Chachuły i in. dokumentuje w 2018 r. owocnik koło kosodrzewiny, 1665 m, 11 października. To publikowane oznaczenia morfologiczne; nie wykonano tu ich ponownego oznaczenia lub badań DNA.
Sezon atlasowy i obserwacje: Dostępny polski atlas Ekologia.pl podaje lipiec lub sierpień–październik. W wierszu sezonu zachowano pełny zakres lipiec–październik z odnośnikiem do atlasu; jest to opracowanie popularne, bez własnej krzywej fenologicznej. Wczesne czerwcowe zbiory z polskiej monografii i GRej pozostają oddzielnymi obserwacjami. Nie wyprowadzono z nich zwykłego sezonu ani jego szczytu. Francuskiego czerwca–listopada i brytyjskich terminów nie podstawiono za polski sezon.
Zasięg i rzadkość: Wojewoda odnotował Babią Górę, 1370–1670 m, za Bujakiewicz 1993. Chachuła i in. (2019) dokumentują własne znalezisko oraz cytują siedem dalszych rejonów Polski. Ich określenie rzadko notowany zachowano jako ocenę z tego opracowania, nie współczesny pomiar liczebności całego kraju. W GRej rozróżniono potwierdzony numer eksykatu od deklaracji przyszłego przekazania materiału. Sam wpis w GRej nie jest statusem prawnej ochrony.
[35] [26] [27] [28] [33] [38]Budowa i metody badań mikroskopowych
Polski materiał i metody: Opis Ronikier opiera się na materiałach z badanego obszaru przechowywanych w KRAM i ZAMU. Ogólne metody obejmowały mikroskop stereoskopowy Nikon SMZ 1500 oraz Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów wykonywano w 5% KOH, niekiedy w odczynniku Melzera lub czerwieni Kongo. Autorka nie wskazuje medium każdego pomiaru tego gatunku ani liczebności prób. Nie uznano 5% KOH za warunek każdej liczby. Wymiary struktur przedstawiano zwykle jako długość × największa szerokość.
Wyniki i porównywalność: Ronikier podaje zarodniki kuliste i gładkie, średnicę 10–12 µm, brak amyloidalności, podstawki 50–57 × 14–15 µm po 4 zarodniki. Bon opisuje podstawki 55–70 × 15–20 µm po 4 zarodniki i średnicę zarodników (9)–11–13–(14) µm; rzadkie formy mają 10–15 × 9–13 µm. Kibby podaje 9,5–13 × 9–12 µm. Średnicy nie przepisano jako dwóch osi, a rzadkich form Bon nie dodano do bezwarunkowego wspólnego pomiaru. Źródłowe zakresy i granice skrajne pozostają rozdzielone.
Komórki ostrza i pochwa: W polskim materiale komórki ostrza mają 20–40 × 16–30 µm i są szeroko maczugowate. Bon opisuje część komórek jako kulisto-trzonkowate 20–30 × 10–15 µm, a pozostałe jako zniekształcone, członowane, powyginane, przewężone, główkowate lub młotkowate. Nie utożsamiono ich automatycznie z cystydami. Osłona Bon zawiera słabo połączone komórki kuliste 20–70 µm i splątane strzępki 3–15 µm. U Kibby’ego zewnętrzna strona pochwy jest głównie nitkowata, a ku wnętrzu komórki nabrzmiewają do sferocyst. Nie połączono różnych warstw i materiałów w jeden bezwarunkowy wynik.
Skórka, trama i sprzążki: Ronikier określa skórkę jako (ixo)cutis z cylindrycznych strzępek i podaje brak sprzążek. Bon opisuje zżelatynizowaną epicutis z wolnymi zakończeniami równymi lub maczugowatymi, szerokości 3–6 µm, i niższą warstwę o innym układzie i pigmencie; hypocutis ma strzępki 10–15 µm, wśród węższych 3–7 µm. Trama blaszek jest bilateralna, z rozróżnieniem zwykłych strzępek, elementów podstawowych i zgrubień. Ogólnego braku sprzążek nie zamieniono w domyślne badanie każdej podstawy komórki. Grenoble podaje zarodniki hialinowe; medium tej ogólnej oceny pozostaje niepodane, osobno od podpisów zdjęć w wodzie.
Reakcje chemiczne: Bon opisuje po fenolu brudną barwę czerwonobrązową do winoróżowej, odróżniając ją od intensywnej barwy czarnej porzeczki. Zarodniki określa jako nieamyloidalne, choć w jodzie zauważa żółtorudawą strefę endospory i stawia pytanie o słabą pseudoamyloidalność. Nie potraktowano znaku zapytania jako wyniku dodatniego ani nie utożsamiono go z klasyczną amyloidalnością całego zarodnika. Dla ujemnego wyniku polskiego materiału nie zgadnięto stężenia odczynnika, temperatury i czasu.
[35] [23] [31] [29]Jadalność i siła dowodów toksykologicznych
Oceny autorów: Grzyby.pl podaje ocenę jadalny, a dydaktyczna karta Lyon 1 — jadalny warunkowo. Lyon przypisuje grupie Amanitopsis hemolizyny, objawy hemolityczne i konieczność ogrzania, ale nie podaje przy tej tezie badania swoistej toksyny tego gatunku ani opisu konkretnej serii pacjentów. To nie jest zwalidowany protokół bezpieczeństwa A. submembranacea. Zachowano rozróżnienie między oceną autora, ostrzeżeniem dla grupy i wynikiem badania gatunku.
Raport ANSES i ograniczenia: ANSES zestawiła francuskie zgłoszenia zatruć z 2017 r., wykluczając jedynie przypadki z zerowym związkiem z ekspozycją. Raport wymienia A. phalloides i A. submembranacea jako taksony rozpoznane ze zdjęć wśród czterech przypadków ciężkich zatruć o obrazie amatoksynowym. Nie rozdziela liczby przypadków między oba gatunki, nie udostępnia dokumentacji indywidualnej, analiz toksyn owocników ani danych wykluczających posiłek mieszany. Nie pozwala przypisać temu gatunkowi wszystkich 25 przypadków, dwóch zgonów ani dowieść obecności amatoksyn w jego prawidłowo oznaczonych owocnikach. Wzmianki nie pominięto, ale nie nadano jej większej siły przyczynowej, niż dokumentuje publikacja.
Stan przeglądu: W sprawdzonym materiale nie odczytano swoistej analizy hemolizyn lub amatoksyn tego gatunku ani pełnej indywidualnej dokumentacji klinicznej, która rozstrzygałaby powyższe rozbieżności. Jest to ograniczenie przeglądu, nie dowód braku toksyn lub badań. Wpis jadalny po pełnej obróbce oznaczono jako ocenę autora karty dydaktycznej. Nie zamieniono go w wynik kliniczny ani w kategorię śmiertelnie trujący.
[28] [33] [21]Akumulacja srebra i inne zastosowania
Wynik badania gatunku: Borovička i in. (2010) analizowali kompleksy srebra w owocnikach A. submembranacea za pomocą chromatografii rozdzielczej, oznaczeń ligandów tiolowych i elektroforezy. Cały odczytany abstrakt podaje, że niemal całe badane srebro znajdowało się wewnątrz komórek, głównie w kompleksach 7 kDa i w mniejszej frakcji 3,3 kDa; w wyizolowanych kompleksach wykryto pojedynczy peptyd tiolowy około 3 kDa. To przesłanka udziału metalotioneiny, nie pełna identyfikacja mechanizmu w każdym okazie.
Poziom odczytu i zakres: Odczytano pełny abstrakt publikacji pierwotnej; nie uzyskano pełnego tekstu z tabelami, numerami okazów i metodami. Zakres 304–692 mg/kg dotyczy w abstrakcie Amanita spp. sekcji Vaginatae, więc nie przypisano jego granic pojedynczemu gatunkowi. Brak glutationu i fitochelatyn odnosi się do badanych wyizolowanych kompleksów, bez stwierdzania ich biologicznej nieobecności w całym gatunku. Wyników doświadczenia Osobovej i in. (2011) na A. strobiliformis nie przeniesiono tutaj.
Zastosowanie a potencjał: Badanie dokumentuje akumulację i wiązanie metalu. Nie potwierdza wdrożenia tego gatunku do oczyszczania środowiska, produkcji leczniczej, suplementów ani pozyskiwania srebra. Osobne poszukiwania zastosowań technicznych, zielarskich, leczniczych, barwierskich i przyprawowych nie dostarczyły w sprawdzonym zakresie źródła pierwotnego potwierdzającego taką praktykę. Nie oznacza to dowodu jej nieistnienia. Brakującego zastosowania nie zastąpiono zastosowaniem innych muchomorów.
[25]Dokumentacja źródłowa
Ustalenia źródła: Tulloss wymienia przy Amanita submembranacea drzewa Abies, Betula, Larix i Picea, w tym przykłady Picea abies, Abies alba i Larix decidua. Zwraca uwagę, że część kolekcji z Anglii, Norwegii i Szkocji dawniej oznaczanych jako A. submembranacea okazała się A. reidiana. Jest to zastrzeżenie identyfikacji tych kolekcji; nie potwierdza ono ich występowania jako A. submembranacea sensu stricto.
[5]Weryfikacja występowania — zakres i ograniczenia
Materiał: Polskie okazy KRAM F-39947, F-50021, F-54314, F-54315, F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Zakres odczytu: Udokumentowana obserwacja.
Data przeglądu: 18.10.2026.
Ograniczenia: Bez własnego ponownego oznaczenia ani genotypowania. Daty zbiorów nie ustalają granic sezonu.
[35] [26] [28]Materiał: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[28]Zakres opracowania
Wymagane kontrole są rozliczone.
Podstawa prawna i zakres oceny
Wyniki analityczne
Skład i aktywność laboratoryjna
- Wynik wykrywania składnika w materiale
- W badanym materiale stwierdzono obecność srebra wewnątrz komórek. [20]
- Masa cząsteczkowa ligandu wiążącego metal
- Masa cząsteczkowa peptydu tiolowego wiążącego srebro wynosi 3 kilodaltony. Autorzy podali hipotezę tożsamości ligandu z metalotioneiną. [20]
Najważniejsze substancje i ich działanie
W owocnikach ze stanowisk o podwyższonej zawartości metali badano wewnątrzkomórkowe wiązanie i zatrzymywanie srebra; pierwiastek ten wiązany jest głównie w kompleksach peptydowych o masie 7 kDa oraz 3,3 kDa, z prawdopodobnym udziałem metalotionein.
W muchomorach z sekcji Vaginatae z terenów zanieczyszczonych odnotowywano stężenia srebra sięgające 304–692 mg/kg.
Spożycie surowych muchomorów z tej grupy wywołuje zatrucia hemolityczne objawiające się nudnościami, wymiotami, rozpadem czerwonych krwinek, krwiomoczem oraz ryzykiem uszkodzenia nerek.
Badania ekologiczne
Dokumentacja źródłowa
Ustalenia źródła: NDFF opisuje jedyne holenderskie znalezisko Amanita submembranacea pod grabem w alei, na glebie zasobnej w składniki pokarmowe. Poza Holandią wymienia stanowiska pod drzewami iglastymi i liściastymi, szczególnie na glebach kwaśnych. Opis jednego holenderskiego miejsca zachowano oddzielnie od szerszej ekologii; występowanie pod grabem nie staje się dowodem mikoryzy z tym drzewem ani ogólną preferencją żyznych gleb.
[4]Siedlisko i występowanie
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Polska | województwo małopolskie | VII–X |
|
Źródła
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (także [29])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (także [31])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (także [25])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)