
Їстівний

Потребує обробки

У сирому вигляді отруйний

Установіть місцезнаходження, щоб побачити дані для свого регіону.


Мухомор напівперетинчастий (Amanita submembranacea) — рідкісний шапинковий гриб родини мухоморових із підроду Vaginatae. Характеризується оливково-сірим або бронзово-бурим капелюшком із рубчастим краєм, сіруватими залишками покривала на поверхні, ніжкою без кільця та специфічною ламкою, брудно-сірою вольвою. Гриб приурочений переважно до гірських і бореальних хвойних або мішаних лісових екосистем.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
Шапинка
- Форма шапинки
- Форма шапинки: дзвоникоподібний.
у молодих плодових тіл: Форма шапинки: яйцеподібний.
Форма шапинки: опуклий.
Форма шапинки: плоский. - Рельєф поверхні шапинки
- Рельєф поверхні шапинки: гладенький.
- Блиск поверхні шапинки
- Блиск поверхні шапинки: блискучий.
- Клейкість і слизистість шапинки
- Клейкість і слизистість шапинки: липкий (незначно).
- Колір шапинки
- Колір шапинки: оливково-коричневий.
Колір шапинки: жовто-коричневою.
Колір шапинки: коричнево-оливковий. - Рельєф поверхні краю шапинки
- Рельєф поверхні краю шапинки: борознистий.
- Діаметр шапинки
- Діаметр шапинки становить 50–100 mm.
- Центр шапинки
- Центр шапинки: з виразним горбком (малий горбик, плаский горбок).
- Протяжність рубчастості краю шапинки
- Протяжність рубчастості краю шапинки: 0,25–0,5 (відносно радіуса шапинки).
- Наявність залишків покривала на шапинці
- Наявність залишків покривала на шапинці: відсутній.
Наявність залишків покривала на шапинці: наявний. - Забарвлення залишків покривала на шапинці
- Забарвлення залишків покривала на шапинці: сіруватий.
- Форма залишків покривала на шапинці
- Форма залишків покривала на шапинці: клаптики.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: пластинки.
Пластинки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
- Колір гіменофора
- Колір гіменофора: білий.
Колір гіменофора: кремовий. - Макроскопічна будова вільного краю пластинок
- Макроскопічна будова вільного краю пластинок: війчасті.
Макроскопічна будова вільного краю пластинок: пластівчасте (незначно). - Відстань між пластинками
- Відстань між пластинками: густо розташовані.
Відстань між пластинками: не дуже густі. - Категорія ширини пластинок
- Категорія ширини пластинок: широке.
Ніжка та основа
- Положення ніжки
- Положення ніжки: центральний.
- Форма ніжки
- Форма ніжки: циліндричний.
- Основа ніжки
- Основа ніжки: бульбоподібний (незначно).
- Колір ніжки
- Колір ніжки: білувате.
у нижній частині ніжки: Колір ніжки: коричнево-оливковий.
Колір ніжки: світло-кремовий. - Покрив поверхні ніжки
- Покрив поверхні ніжки: луската.
- Внутрішня будова ніжки
- Внутрішня будова ніжки: порожнистий.
- Консистенція ніжки
- Консистенція ніжки: крихкий.
- Довжина ніжки
- Довжина ніжки: 70–150 mm.
- Діаметр ніжки
- Діаметр ніжки: 7–15 mm.
- Піхва
- Піхва: наявний.
Піхва: наявний.
Піхва: наявний.
Кільце
- Наявність кільця
- Наявність кільця: без кільця.
Покривало біля основи
- Будова покривала біля основи ніжки
- Будова покривала біля основи ніжки: мішкоподібна.
Будова покривала біля основи ніжки: мішкоподібна.
Будова покривала біля основи ніжки: смуги (смуги розташовані кільцями, в нижній частині ніжки).
- Стійкість піхви та покривала в основі до пошкодження
- Стійкість піхви та покривала в основі до пошкодження: легко пошкоджується (елемент покривала біля основи ніжки: вольва).
- Стійкість м’якуша ніжки до перелому або розриву
- Стійкість м’якуша ніжки до перелому або розриву: крихкий.
- Кремезність ніжки
- Кремезність ніжки: стрункий.
- Забарвлення піхви та покривала в основі ніжки
- Забарвлення піхви та покривала в основі ніжки: сірий (елемент покривала біля основи ніжки: вольва).
Забарвлення піхви та покривала в основі ніжки: сірий (елемент покривала біля основи ніжки: вольва).
М'якуш
- Колір м’якуша
- Колір м’якуша: білий.
- Запах м’якуша
- Запах м’якуша: слабкий.
Запах м’якуша: відсутній. - Відтінок смаку м’якуша
- Відтінок смаку м’якуша: горіховий.
- Характер смаку м'якоті
- Характер смаку м'якоті: м’який.
- Наявність відчутного смаку м'якуша
- Наявність відчутного смаку м'якуша: невідчутний.
Де і коли росте
- Оселище
- Оселище: листяний ліс.
Оселище: хвойний ліс.
Оселище: мішаний ліс.
Оселище: чагарники. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці.
Характер росту плодових тіл: розсіяні групи. - Частота трапляння
- Частота трапляння: рідкісний.
- Період плодоношення
- Плодові тіла з’являються з липня до жовтня.
- Територія поширення
- Територія поширення: підтверджено.
Їстівність і кулінарія
- Їстівність
- Їстівний
- Необхідна обробка
- Потребує обробки
- Споживання в сирому вигляді
- У сирому вигляді отруйний
Право
- Охорона
- У Польщі вид не підлягає видовій охороні.
- Торгівля
- У Польщі вид не дозволено для торгівлі чи виробництва грибної продукції.
З чим можна сплутати
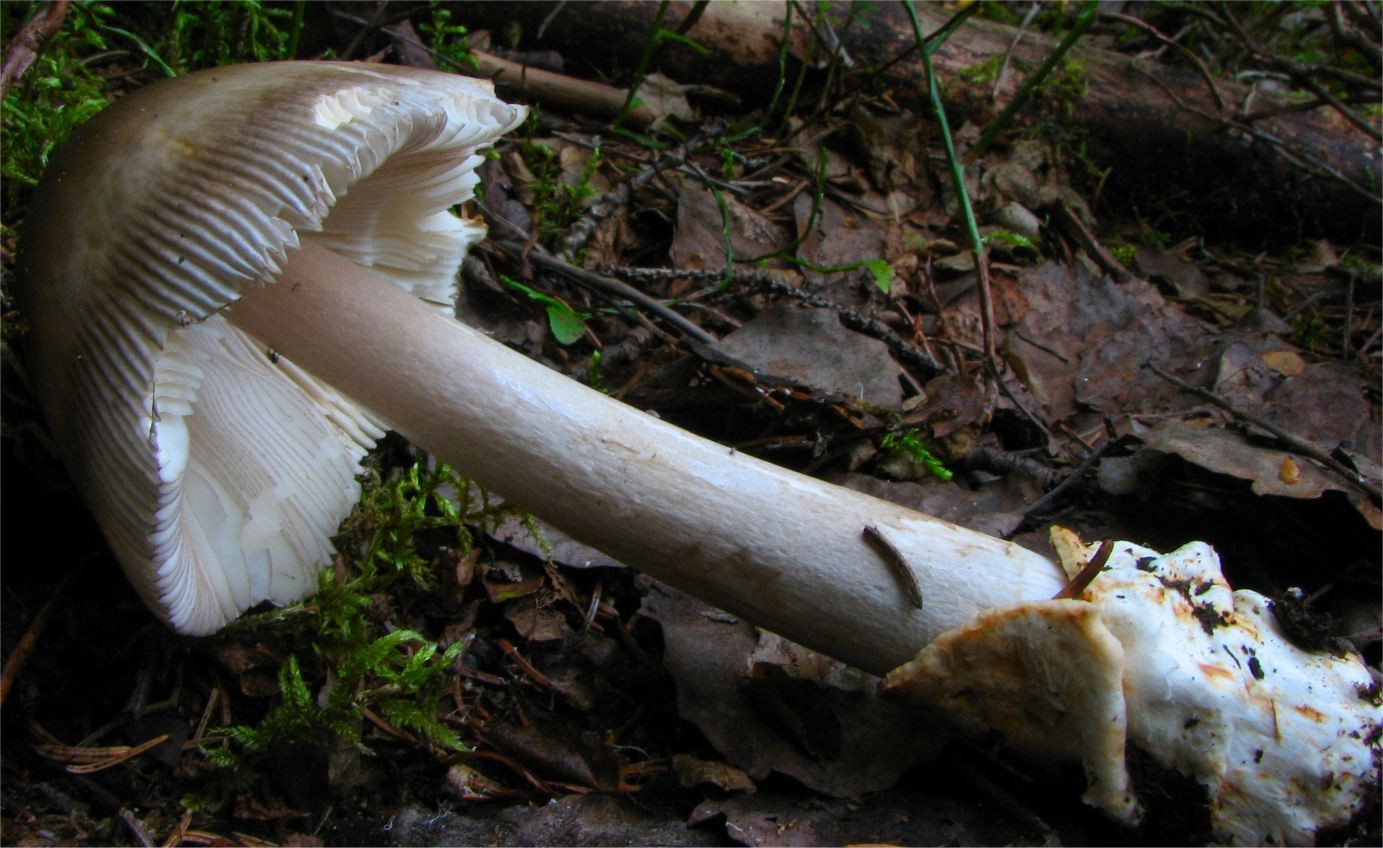
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Джерело фотографії · CC BY-SA 3.0Amanita battarrae
Найважливіші відмінності
Мухомор бронзово-оливковий (Amanita submembranacea) утворює шапинки, частіше вкриті великими клаптями покривала, а його піхва біля основи ніжки виразно сіріє з внутрішнього боку.
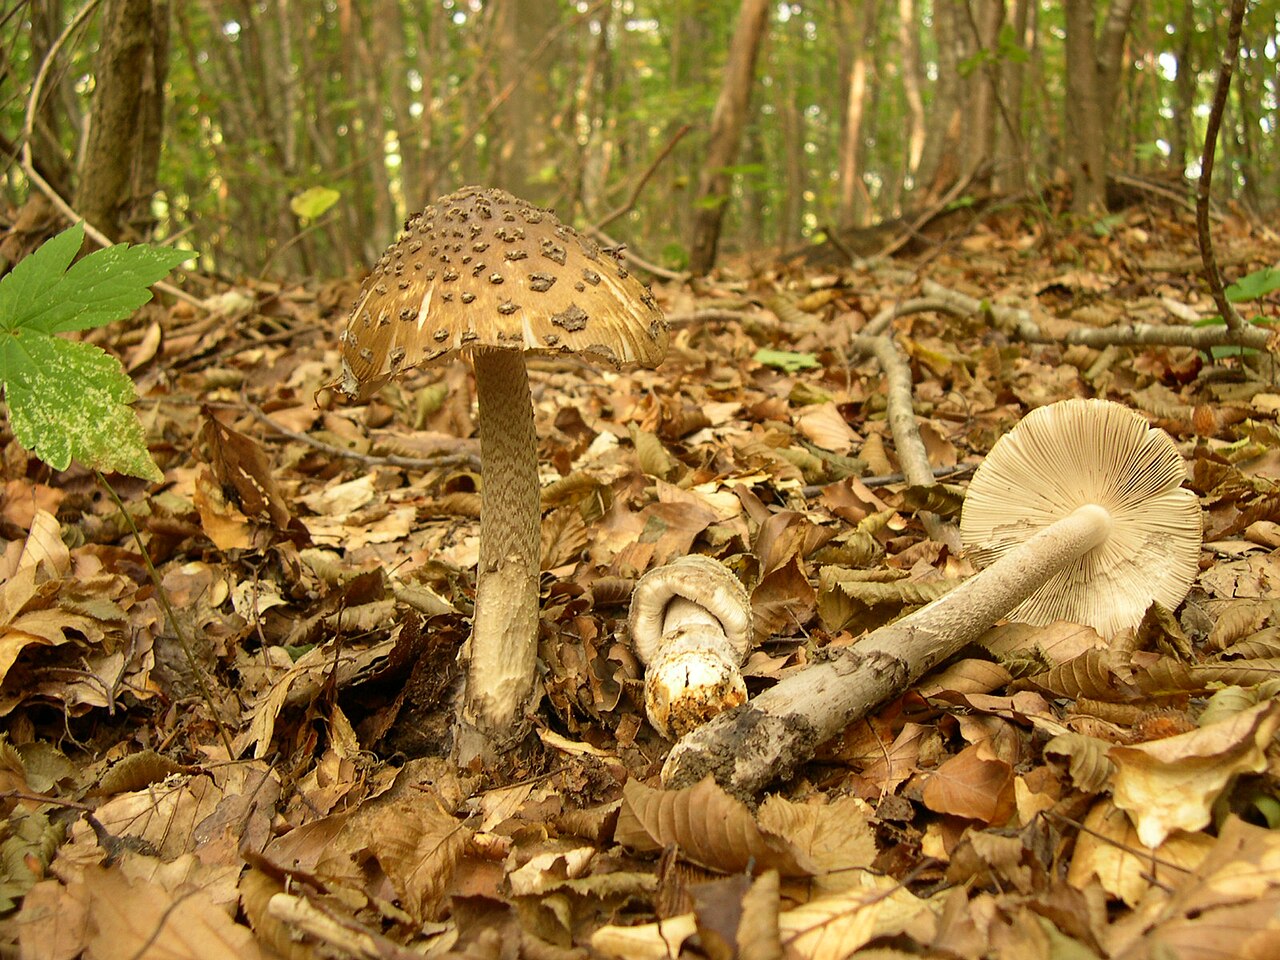
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Джерело фотографії · CC BY-SA 3.0Amanita ceciliae
Найважливіші відмінності
Мухомор бронзово-оливковий (Amanita submembranacea) відрізняється наявністю великих фрагментів покривала на шапинці та сіріючою зсередини піхвою, ростучи переважно в гірських лісах на кислих ґрунтах.
FAQ
Чи є мухомор напівперетинчастий безпечним у сирому вигляді?
Ні, у сирому стані він токсичний і обов'язково потребує повноцінного відварювання.
Яка обробка потрібна перед їжею?
Необхідне тривале відварювання (не менше 20–25 хвилин) з обов'язковим зливанням води.
У яких біотопах зазвичай зростає цей гриб?
Росте переважно в гірських хвойних і змішаних лісах на кислих моховитих ґрунтах.
З якими деревами пов'язане його зростання?
Здебільшого з ялиною, ялицею та гірською сосною, іноді з буком або березою.
Коли триває сезон його плодоношення?
Сезон триває з кінця липня до середини чи кінця вересня у прохолодних гірських масивах.
Які смакові якості притаманні цьому виду?
Смак невиразний, нейтральний і прісний, а м'якоть надто крихка й водяниста.
Чи є популярним цей вид серед грибників?
Ні, через посередній смак, крихкість і рідкісність його збирають украй рідко.
Чи має ніжка цього мухомора кільце?
Ні, кільце на ніжці повністю відсутнє протягом усього розвитку гриба.
Яку нехарчову функцію виконує цей вид у науці?
Використовується як біоіндикатор стану старовікових гірських ялинових лісових систем.
Якого кольору вольва біля основи ніжки?
Вольва ламка, білувато-сіра або з характерним брудно-сірим відтінком.
Любитель
Назви та історія
- Obowiązująca nazwa krajowa
- muchomor brązowooliwkowy
- Obowiązująca nazwa taksonomiczna
- Amanita submembranacea (Bon) Gröger
- Pozostałe nazwy
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: білий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: кулястий. Форма спори: майже кулястий. Форма спори: кулястий. Форма спори: кулястий. Форма спори: ізодіаметричний (майже, рідко).
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 9,5–13 µm, ширина 9–12 µm.
- Розміри
- Рідко спостережувана форма спори (майже рівновимірна форма) може мати довжину від 10 до 15 мікрометрів і ширину від 9 до 13 мікрометрів.
Розміри порівнюйте після калібрування шкали мікроскопа.
Дослід із фенолом
- Матеріал
- М'якуш плодового тіла
- Реактив
- фенол
- Виконання
- В описаній пробі застосовано фенол до вказаного матеріалу.
- Умови та прогалини в джерелах
У джерелі не вказано: підготовки зразка, концентрації фенолу, кількості реактиву, температури, часу зчитування, детального способу нанесення реактиву.
Спостереження / результат
- Результат у джерелі
- У м'якуші після застосування фенолу отримано брудне червоно-буре забарвлення.
- Результат у джерелі
- У м'якуші після застосування фенолу отримано винно-рожеве забарвлення.
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
- Родючість ґрунту
- Родючість ґрунту: родючий.
- Листяні дерева в оточенні
- Листяні дерева в оточенні: дуб.
Листяні дерева в оточенні: бук.
Листяні дерева в оточенні: береза.
Листяні дерева в оточенні: вільха.
Листяні дерева в оточенні: липа.
Листяні дерева в оточенні: граб. - Хвойні дерева в оточенні
- Хвойні дерева в оточенні: ялина.
Хвойні дерева в оточенні: ялиця. - Кущі в оточенні
- Кущі в оточенні: Pinus mugo.
- Мікоризні партнери
- Загальний зв’язок виду: Мікоризні партнери: Abies (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Betula (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Larix (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Picea (загальний перелік партнерів). - Тип живлення
- Тип живлення: ектомікоризний.
Некулінарні застосування
З огляду на вузький ареал та відносну рідкісність, мухомор напівперетинчастий практично не використовується в побуті, проте має специфічне науково-практичне значення. Гриб слугує цінним біологічним індикатором збереженості старовікових гірських хвойних лісів і кислих торф'янистих ґрунтів, що використовуються в природоохоронних програмах моніторингу субальпійських екосистем.
У минулому пігменти з брудно-оливкових шапинок подекуди випробовувалися ремісниками як барвник для отримання натуральних болотних, сіро-зелених відтінків на нефарбованій овечій вовні. У наукових закладах плодове тіло застосовують для створення навчальних гербаріїв, що ілюструють еволюцію та поліморфізм секції Vaginatae у специфічних гірських кліматичних зонах.
Історія та культура
Мухомор напівперетинчастий став відомий мікологічній спільноті завдяки ретельним польовим дослідженням гірської флори Європи у другій половині XIX та на початку XX століття. Довгий час він залишався предметом наукових суперечок серед дослідників Альпійського регіону щодо його розмежування із суміжними темними формами поплавків, що зафіксовано в класичних франко-швейцарських мікологічних працях.
У фольклорі мешканців гірських високогірних долин Швейцарії, Австрії та французької Савої ці темні мухомори асоціювалися з глухими смерековими хащами та вологими мочарами, вважаючись символом суворої природи субальпійського лісу. Гриб не набув значної популярності в масовій культурі через свою вузьку екологічну нішу, проте залишається символічним видом для ентузіастів альпійської мікофлори та мікологічних товариств Європи.
Їстівність і безпека
Мухомор напівперетинчастий вважається умовно-їстівним видом, проте його практична цінність оцінюється як дуже низька. Як і решта споріднених безкільцевих мухоморів, у сирому стані він токсичний через наявність нестійких термолабільних токсинів, здатних спричинити диспепсичні розлади та руйнування формених елементів крові. Безпечне споживання можливе лише після тривалого ретельного відварювання зі зливанням відвару.
М'якоть тонка, водяниста, надзвичайно крихка, позбавлена виразного запаху, має посередній нейтральний або злегка солодкуватий смак. У більшості країн Центральної, Південної та Східної Європи населення повністю цурається збору цього виду через його рідкісність, низькі кулінарні властивості та небезпеку сплутати його з токсичними представниками роду. Окремі грибники в гірських селах вживають його лише зрідка, змішуючи з іншими лісовими грибами.
Оселище та поширення
Мухомор напівперетинчастий — переважно гірський та бореальний вид із розірваним ареалом у Європі. Він трапляється в Альпах, Карпатах, на схилах Піренеїв, у гірських масивах Центральної Європи, а також на території Фенноскандії. Гриб є мікоризоутворювачем, пов'язаним насамперед із хвойними породами — ялиною європейською, ялицею білою та сосною, хоча зрідка може рости під буком і березою на висотах понад шістсот метрів над рівнем моря.
Типовим субстратом для виду є кислі, вологі ґрунти, багаті на кремнезем, торф'янисті відкладення або вкриті подушками сфагнових і зелених мохів. Сезон плодоношення порівняно короткий і залежить від висотної поясності: перші плодові тіла виникають наприкінці липня або в серпні, а основна хвиля триває до середини чи кінця вересня, зрідка захоплюючи початок жовтня за відсутності ранніх морозів.
Джерела
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Необхідна обробка
- Потребує обробки
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: вихідна умова cuisson; відсутність специфічного валідованого протоколу часу й температури
- Їстівність
- Їстівний — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; дидактична картка, не перевірка безпеки
- Споживання в сирому вигляді
- Отруйний
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: автор джерела пов'язує відсутність термічної обробки зі шкідливим гемолітичним впливом. Не встановлює перевіреного безпечного протоколу приготування.
Наукові назви та таксономія
- Чинна наукова назва
Amanita submembranacea (Bon) Gröger
Наукові назви та таксономія
Amanita submembranacea (Bon) Gröger належить до родини мухоморових (Amanitaceae) і секції Vaginatae. Сучасну комбінацію опубліковано в 1979 році на основі базоніма Amanitopsis submembranacea Bon 1975 року.
Наукові назви та таксономія
В історичній мікологічній літературі з цим таксоном іноді пов'язують неопубліковану назву Amanita subalpina M. M. Moser ined.
Межі таксона та обмеження визначення
Сучасна ревізія європейської секції Vaginatae підтверджує видову самостійність A. submembranacea на основі зіставлення мікроскопічних ознак піхви з аналізом послідовностей nrDNA ITS, nrDNA LSU, RPB1 та TEF1-α.
Екологія та поширення
- Частота трапляння
- Польща: Частота трапляння: рідкісний. [28]
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
Інші лабораторні ознаки
- Верхівка клітин краю пластинки
- Верхівка клітин краю пластинки: голівчастий. [25]
- Перетяжки клітин краю пластинки
- Перетяжки клітин краю пластинки: звужене. [25]
- Хід клітин краю пластинки
- Хід клітин краю пластинки: звивистий. [25]
- Довжина клітини краю пластинки
- Довжина клітини краю пластинки: 20–40 µm. [37]
Довжина клітини краю пластинки: 20–30 µm. [25] - Членування клітин краю пластинки
- Членування клітин краю пластинки: членисті. [25]
- Форма інших клітин леза пластинки
- Форма інших клітин леза пластинки: булавоподібний (широкий). [37]
Форма інших клітин леза пластинки: кулястий на ніжці (у частині клітин). [25]
Форма інших клітин леза пластинки: схожий на членик опунції. [25]
Форма інших клітин леза пластинки: молоткоподібний. [25] - Регулярність групи клітин краю пластинки
- Регулярність групи клітин краю пластинки: неправильний (часто). [25]
- Ширина клітини краю пластинки
- Ширина клітини краю пластинки: 16–30 µm. [37]
Ширина клітини краю пластинки: 10–15 µm. [25] - Желатинізація субгіменію
- Желатинізація субгіменію: желатинізована (слабко желатинізовані, іноді, на краї пластинки). [25]
- Будова субгіменію
- Будова субгіменію: звивисте. [25]
Будова субгіменію: членисте (у базидіофорній зоні). [25]
Будова субгіменію: субклітинне (у базидіофорній зоні). [25] - Типи клітин у загальному покривалі
- Типи клітин у загальному покривалі: сфероцисти (частково). [25]
Типи клітин у загальному покривалі: ниткоподібні гіфи. [25]
Типи клітин у загальному покривалі: ниткоподібні гіфи (переважання, зовнішня поверхня покривала, біля основи ніжки). [33]
Типи клітин у загальному покривалі: сфероцисти (біля основи ніжки, частка зростає, у напрямку вглиб). [33] - Діаметр кулястих клітин загального покривала
- Діаметр кулястих клітин загального покривала: 20–70 µm (сфероциста). [25]
- Форма клітини загального покривала
- Форма клітини загального покривала: кулястий. [25]
- Ширина гіфи загального покривала
- Ширина гіфи загального покривала: 3–15 µm. [25]
Шкірка шапинки
- Розташування гіф шкірки шапинки
- Розташування гіф шкірки шапинки: Паралельні. [31]
Розташування гіф шкірки шапинки: Паралельні (гіпокутіс, більш-менш). [25] - Форма елементів шкірки шапинки
- Форма елементів шкірки шапинки: циліндричний. [37]
- Ширина елементів шкірки шапинки
- Ширина елементів шкірки шапинки: 10–15 µm (гіпокутіс). [25]
Ширина елементів шкірки шапинки: 3–6 µm. [31]
Ширина елементів шкірки шапинки: 3–6 µm (епікутіс). [25] - Мінливість желатинізації шкірки шапинки
- Мінливість желатинізації шкірки шапинки: мінлива. [37]
Мінливість желатинізації шкірки шапинки: мінлива (епікутіс). [25] - Занурення гіф шкірки в драглисту речовину
- Занурення гіф шкірки в драглисту речовину: наявний (ступінь желатинізації мінливий, епікутіс). [25]
Спори
- Колір спор під мікроскопом
- Колір спор під мікроскопом: гіаліновий. [31]
Колір спор під мікроскопом: жовтий (іржава, слабке забарвлення). [25] - Джерельна оцінка реакції ендоспорію в йоді
- Джерельна оцінка реакції ендоспорію в йоді: псевдоамілоїдна (слабко, результат поставлено під сумнів у джерелі). [25]
- Положення краплі спори
- Положення краплі спори: центральний. [25]
- Краплі всередині спори
- Краплі всередині спори: наявний (великі краплі). [25]
Трама гіменофора
Матеріал і методи досліджень
Опис ознак — джерело та обсяг
Матеріал: Загальний авторський опис Lyon 1: Odeur faible, voire nulle.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Дидактичний опис без номера зразка; невідчутний запах — це інший аспект, ніж слабка інтенсивність.
Опис ознак — джерело та обсяг
Матеріал: Досліджений польський матеріал в описі Ronikier 2012, смак mild, запах none.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Опис автора; не інструкція зі смакових проб сирого гриба.
Проба з хімічним реактивом — матеріал та обмеження
Матеріал: М'якуш плодових тіл в описі Bon 1975, абзац Chair; фенол, без зазначення концентрації, температури та часу зчитування.
Обсяг зчитування: Задокументоване спостереження.
Обмеження: Не додано хронологічної зміни кольору чи протоколу з інших видів. Оригінальне позначення кольору та власний кваліфікатор залишаються окремими.
Дослідження складу та активності — матеріал та обмеження
Матеріал: Плодові тіла A. submembranacea, внутрішньоклітинне срібло; точний зведений матеріал описаний в анотації.
Обсяг зчитування: Анотація.
Дослідження молекул — Borovička та ін. (2010)
Матеріал: Комплекси срібла та їхній пептидний ліганд із плодових тіл A. submembranacea; молекулярне розділення фракцій в анотації.
Обсяг прочитаного: Анотація.
Спільні обмеження зчитування джерела
Обмеження: Прочитано повну анотацію первинної публікації через індекс EuropePMC. Повний текст статті не читали; відсутні N та деталі щодо окремих зразків. Загальний діапазон 304–692 мг/кг для секції Vaginatae не приписували цьому виду. Це не є доказом упровадження біоремедіації чи лікувального застосування. Методи, зазначені в анотації: ексклюзійна хроматографія за розміром, флуорометрія сульфгідрильних груп, ОФ-ВЕРХ і вдосконалений поліакриламідний електрофорез. Не зазначені параметри не доповнювалися. Ідентифікацію виду надали автори (2010). Метод ідентифікації та ваучерний зразок недоступні в прочитаній анотації; повторне визначення матеріалу не проводилося.
Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- Результати, наведені в джерелах — Кількість спор на базидії
- Liczba zarodników na jednej podstawce wynosi 4. [25] [37]
- Результати, наведені в джерелах — Діаметр спори
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [37]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [25]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [31]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [31]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [31]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [25]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [25]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [25]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [25]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [25]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [25]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [25]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [25]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [25]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [25]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [25]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [25]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [25]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [25]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [25]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [25]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [25]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [25]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [25]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [25]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [25]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [25]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [25]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [37]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [37]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [37]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [37]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [37]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [37]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [37]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [37]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [37]
Kształt zarodnika — zapis źródłowy: „globose” [37]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [37]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [33]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [33]
Назви та обсяг таксона
Основна назва: Muchomor brązowooliwkowy — це назва, запропонована Воєводою в польському переліку 2003 р., с. 50; пізніший польський польовий звіт використовує ту саму назву. Це не є назва, встановлена нормативним актом. Атлас Ekologia.pl наводить також mglejarka brązowooliwkowa та gryzetka brązowooliwkowa; їх збережено як альтернативні назви з походженням з атласу. Не знайдено незалежного підтвердження давніх етикеток szaropochwowy та mglejarka szaropochwowa.
Базонім і синонімія: Бон описав Amanitopsis submembranacea у 1975 р., с. 176, на основі матеріалу з Франції; тип Fontanet,17.09.1974,№ 740917. Поточна комбінація в реєстрі — Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum наводить також var. griseoargentata Contu 1986 як синонім. Це думка реєстру; тип цього різновиду не досліджувався. A. subalpina M. M. Moser ined. залишається історичною неопублікованою назвою. Колишній var. bispora, нині A. reidiana, як і порівнюваний A. olivaceogrisea, не включено до даних виду.
Молекулярні дані: Варга та ін. (2024), таблиця 1, наводять власний зразок DB-2018-07-31-1(AD25), Трафої, Південний Тіроль, Італія, із послідовностями PP375774,PP375269,PP358527,PP273684. Решта рядків охоплюють Естонію, Німеччину, Бельгію, Францію та Австрію і посилаються на раніші праці. Ці записи не розглядалися як генетична верифікація польських зразків або власний продукт.
Польські місцезнаходження, оселище та сезон
Гербарний матеріал: Ронікер описала плодові тіла з масиву Сарньої Скали: KRAM F-39947 (20.06.2000),F-50021 (04.07.2000),F-54314 (03.07.2002),F-54315 (20.08.2002),F-54316 (16.08.2003), з висоти 910–1160 м, на ґрунті, у бучині, ялицево-смерековому та смерековому лісі. Рис. 9 пов'язано з F-39947. Звіт Хахули та ін. документує у 2018 р. плодові тіло біля гірської сосни,1665 м,11 жовтня. Це опубліковані морфологічні визначення; тут не проводилося їх повторне визначення або дослідження ДНК.
Атласний сезон і спостереження: Доступний польський атлас Ekologia.pl вказує липень або серпень–жовтень. У рядку сезону збережено повний діапазон липень–жовтень із посиланням на атлас; це популярне видання без власної фенологічної кривої. Ранні червневі збори з польської монографії та GRej залишаються окремими спостереженнями. З них не виводили звичайного сезону чи його піку. Французький червень–листопад і британські строки не підставлялися замість польського сезону.
Поширення та рідкісність: Воєвода зафіксував Баб'ю Гуру,1370–1670 м, за Буякевич 1993. Хахула та ін. (2019) документують власну знахідку та цитують сім інших регіонів Польщі. Їхнє визначення rzadko notowany збережено як оцінку з цієї праці, а не сучасне вимірювання чисельності всієї країни. У GRej розмежовано підтверджений номер ексикату та декларацію щодо майбутньої передачі матеріалу. Сам запис у GRej не є статусом правової охорони.
Будова та методи мікроскопічних досліджень
Польський матеріал і методи: Опис Ронікер ґрунтується на матеріалах із досліджуваної території, що зберігаються в KRAM і ZAMU. Загальні методи включали стереомікроскоп Nikon SMZ 1500 та Nikon Eclipse E600, стандартне світло або контраст Номарського; більшість вимірювань проводили у 5% KOH, іноді в реактиві Мельцера або конго червоному. Авторка не зазначає середовища кожного вимірювання цього виду чи обсягу вибірок. Не визнано 5% KOH обов'язковою умовою для кожного числа. Розміри структур зазвичай наводилися як довжина × найбільша ширина.
Результати та порівнянність: Ронікер наводить спори кулясті й гладкі, діаметр 10–12 µm, відсутність амілоїдності, базидії 50–57 × 14–15 µm по 4 спори. Бон описує базидії 55–70 × 15–20 µm по 4 спор і діаметр спор (9)–11–13–(14) µm; рідкісні форми мають 10–15 × 9–13 µm. Кіббі наводить 9,5–13 × 9–12 µm. Діаметр не переписувався як дві осі, а рідкісні форми Бона не додавалися до безумовного спільного виміру. Вихідні діапазони та крайні межі залишаються розділеними.
Клітини леза та піхва: У польському матеріалі клітини леза мають розміри 20–40 × 16–30 µm і є широкобулавоподібними. Бон описує частину клітин як кулясто-ніжкові 20–30 × 10–15 µm, а решту — як деформовані, членисті, вигнуті, перетягнуті, головчасті або молотоподібні. Їх не ототожнювали автоматично з цистидами. Покривало Бона містить слабко з'єднані кулясті клітини 20–70 µm і переплетені гіфи 3–15 µm. У Кіббі зовнішній бік піхви переважно нитчастий, а досередини клітини роздуваються до сфероцист. Різні шари й матеріали не об'єднувалися в один безумовний результат.
Шкірка, трама та пряжки: Ронікер визначає шкірку як (ixo)cutis із циліндричних гіф і вказує на відсутність пряжок. Бон описує желатинізований epicutis із вільними закінченнями однаковими або булавоподібними, шириною 3–6 µm, і нижчий шар з іншим розташуванням і пігментом; hypocutis має гіфи 10–15 µm, серед вужчих 3–7 µm. Трама пластинок білатеральна, з розрізненням звичайних гіф, базисних елементів і потовщень. Загальну відсутність пряжок не перетворювали на очікування перевірки кожної основи клітини. Гренобль зазначає гіалінові спори; середовище цієї загальної оцінки залишається невказаним, окремо від підписів до фотографій у воді.
Хімічні реакції: Бон описує з фенолом брудне червоно-буре до винно-рожевого забарвлення, відрізняючи його від інтенсивного кольору чорної смородини. Спори він визначає як неамілоїдні, хоча в йоді відзначає жовто-рудувату зону ендоспори і ставить під сумнів слабку псевдоамілоїдність. Знак питання не розглядався як позитивний результат і не ототожнювався з класичною амілоїдністю всієї спори. Для негативного результату польського матеріалу не припускалися концентрація реактиву, температура й час.
Їстівність і сила токсикологічних доказів
Оцінки авторів: Grzyby.pl наводить оцінку «їстівний», а дидактична картка Lyon 1 — «умовно їстівний». Lyon приписує групі Amanitopsis гемолізини, гемолітичні симптоми та необхідність термічної обробки, але не наводить до цієї тези дослідження специфічного токсину цього виду чи опису конкретної серії пацієнтів. Це не валідований протокол безпеки A. submembranacea. Збережено розмежування між оцінкою автора, застереженням для групи та результатом дослідження виду.
Звіт ANSES та обмеження: ANSES звела французькі повідомлення про отруєння з 2017 р., виключивши лише випадки з нульовим зв'язком з експозицією. Звіт перелічує A. phalloides та A. submembranacea як таксони, розпізнані за фотографіями серед чотирьох випадків тяжких отруєнь з аматоксиновою картиною. Він не розподіляє кількість випадків між обома видами, не надає індивідуальної документації, аналізів токсинів плодових тіл або даних, що виключають споживання змішаної їжі. Він не дозволяє приписати цьому виду всі 25 випадків, дві смерті або довести наявність аматоксинів у його правильно визначених плодових тілах. Згадку не пропущено, але їй не надано більшої причинної сили, ніж документує публікація.
Стан огляду: У перевіреному матеріалі не виявлено специфічного аналізу гемолізинів або аматоксинів цього виду, як і повної індивідуальної клінічної документації, яка б вирішувала зазначені розбіжності. Це є обмеженням огляду, а не доказом відсутності токсинів чи досліджень. Запис «їстівний після повної обробки» позначено як оцінку автора дидактичної картки. Його не перетворено на клінічний результат або на категорію смертельно отруйного.
Акумуляція срібла та інші застосування
Результат дослідження виду: Боровічка та ін. (2010) аналізували комплекси срібла в плодових тілах A. submembranacea за допомогою роздільної хроматографії, визначення тіолових лігандів та електрофорезу. Весь прочитаний анотаційний опис (абстракт) зазначає, що майже все досліджене срібло містилося всередині клітин, головним чином у комплексах 7 kDa і в меншій фракції 3,3 kDa; в ізольованих комплексах виявлено поодинокий тіоловий пептид близько 3 kDa. Це свідчення участі металотіонеїну, а не повна ідентифікація механізму в кожному зразку.
Рівень ознайомлення та охоплення: Прочитано повний абстракт первинної публікації; повний текст із таблицями, номерами зразків і методами отримано не було. Діапазон 304–692 mg/kg в абстракті стосується Amanita spp. секції Vaginatae, тому його межі не приписувалися окремому виду. Відсутність глутатіону та фітохелатинів стосується досліджених ізольованих комплексів без ствердження про їхню біологічну відсутність у всього виду. Результати експерименту Особової та ін. (2011) на A. strobiliformis сюди не переносилися.
Застосування та потенціал: Дослідження документує накопичення та зв'язування металу. Воно не підтверджує впровадження цього виду для очищення довкілля, фармацевтичного виробництва, добавок або добування срібла. Окремі пошуки технічного, трав'яного, лікарського, фарбувального та кулінарного (як приправи) застосування не виявили в перевіреному обсязі первинного джерела, що підтверджувало б таку практику. Це не означає доказу її неіснування. Відсутнє застосування не підмінялося застосуванням інших мухоморів.
Джерельна документація
Висновки джерела: Туллосс наводить для Amanita submembranacea дерева Abies, Betula, Larix і Picea, зокрема приклади Picea abies, Abies alba та Larix decidua. Він звертає увагу на те, що частина колекцій з Англії, Норвегії та Шотландії, які раніше визначалися як A. submembranacea, виявилася A. reidiana. Це застереження щодо ідентифікації цих колекцій; воно не підтверджує їх трапляння як A. submembranacea sensu stricto.
Верифікація поширення — обсяг та обмеження
Матеріал: Polskie okazy KRAM F-39947,F-50021,F-54314,F-54315,F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Обсяг ознайомлення: Задокументоване спостереження.
Дата перегляду: 18.10.2026.
Обмеження: Без власного повторного визначення чи генотипування. Дати зборів не встановлюють меж сезону.
Верифікація поширення — обсяг та обмеження
Матеріал: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Обсяг опрацювання: Фрагменти джерел.
Опрацьовано фрагмент джерела; повний текст і методи не були верифіковані.
Дата перегляду: 21.10.2026.
Обмеження: Вихідне визначення та обсяг поняття збережено. Не декларувалося нового дослідження зразків чи опрацювання всіх публікацій, цитованих джерелом.
Обсяг опрацювання
Обов'язкові перевірки врегульовані.
Правова основа та межі оцінки
Аналітичні результати
Склад і лабораторна активність
- Результат виявлення компонента в матеріалі
- Результат виявлення компонента в матеріалі: виявлено (Ag, препарат із плодових тіл, ідентифікований у джерелі, внутрішньоклітинно). [7]
- Молекулярна маса ліганда, що зв'язує метал
- Молекулярна маса ліганда, що зв'язує метал: 3 kDa (Ag, тіоловий пептид, гіпотетична ідентичність, гіпотеза: металотіонеїн, ліганд, що зв’язує срібло, наведене значення). [7]
- Молекулярна маса комплексу металу
- Молекулярна маса комплексу металу: 7 kDa (Ag, комплекс металу, внутрішньоклітинно, основний компонент, основна фракція комплексу срібла, наведене значення). [7]
Молекулярна маса комплексу металу: 3,3 kDa (Ag, комплекс металу, внутрішньоклітинно, другорядний компонент, другорядна фракція комплексу срібла, наведене значення). [7]
Найважливіші речовини та їхня дія
Найважливіші речовини та їхня дія
У плодових тілах із місцезростань із підвищеним умістом металів досліджували внутрішньоклітинне зв'язування та утримання срібла; цей елемент зв'язується переважно в пептидних комплексах масою 7 кДа та 3,3 кДа, з імовірною участю металотіонеїнів.
Найважливіші речовини та їхня дія
У мухоморах із секції Vaginatae із забруднених територій відзначали концентрації срібла, що сягали 304–692 мг/кг.
Найважливіші речовини та їхня дія
Вживання сирих мухоморів із цієї групи спричиняє гемолітичні отруєння, що проявляються нудотою, блюванням, руйнуванням еритроцитів, гематурією та ризиком ураження нирок.
Екологічні дослідження
Джерельна документація
Висновки джерела: NDFF описує єдину нідерландську знахідку Amanita submembranacea під грабом в алеї, на багатому на поживні речовини ґрунті. За межами Нідерландів наводить місцезростання під хвойними та листяними деревами, особливо на кислих ґрунтах. Опис одного нідерландського місця збережено окремо від ширшої екології; трапляння під грабом не стає доказом мікоризи з цим деревом чи загальної переваги родючих ґрунтів.
Оселище та поширення
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Плодоношення | Джерела |
|---|---|---|---|
| Польща | Малопольське воєводство | VII–X |
|
Джерела
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (także [31])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Borovička i in. 2010 — wyniki abstraktu, odczyt 2026-10-19
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (także [33])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (także [27])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)