
Ядомы

Патрабуе апрацоўкі

У сырым выглядзе атрутны

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


Мухамор падперапончаты — рэдкі шапкавы грыб з групы бязбондавых паплаўкоў. Адрозніваецца шаравата-аліўкавай або карычневай шапкай са шматлікімі шэрымі рэшткамі пакрывала і тонкай ломкай ножкай з перапончатай похвай. Сустракаецца пераважна ў горных і перадгорных хвойніках.
Распазнаванне, асяроддзе пражывання і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- Форма капялюшыка: звонападобны.
у маладых пладовых цел: Форма капялюшыка: яйкападобны.
Форма капялюшыка: выпуклы.
Форма капялюшыка: плоскі. - Рэльеф паверхні капялюшыка
- Рэльеф паверхні капялюшыка: гладкі.
- Бляск паверхні капялюшыка
- Бляск паверхні капялюшыка: бліскучы.
- Ліпкасць і слізістасць капялюшыка
- Ліпкасць і слізістасць капялюшыка: ліпкі (нязначна).
- Колер капялюшыка
- Колер капялюшыка: аліўкава-карычневы.
Колер капялюшыка: жоўта-карычневай.
Колер капялюшыка: карычнева-аліўкавы. - Рэльеф паверхні краю капялюшыка
- Рэльеф паверхні краю капялюшыка: баразнаваты.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 50–100 mm.
- Цэнтр капялюшыка
- Цэнтр капялюшыка: з выразным гарбком (малы грудок, плоскі бугарок).
- Працягласць рубчастасці краю шапкі
- Працягласць рубчастасці краю шапкі: 0,25–0,5 (адносна радыуса шапачкі).
- Наяўнасць рэшткаў пакрывала на шапцы
- Наяўнасць рэшткаў пакрывала на шапцы: адсутны.
Наяўнасць рэшткаў пакрывала на шапцы: наяўны. - Афарбоўка рэшткаў пакрывала на шапцы
- Афарбоўка рэшткаў пакрывала на шапцы: шэраваты.
- Форма рэшткаў пакрывала на шапцы
- Форма рэшткаў пакрывала на шапцы: лахманы.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: пласцінкі.
Пласцінкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
- Колер гіменафора
- Колер гіменафора: белы.
Колер гіменафора: крэмавы. - Макраскапічная будова вольнага краю пласцінак
- Макраскапічная будова вольнага краю пласцінак: вейкавыя.
Макраскапічная будова вольнага краю пласцінак: шматкаватая (нязначна). - Адлегласць паміж пласцінкамі
- Адлегласць паміж пласцінкамі: густа размешчаныя.
Адлегласць паміж пласцінкамі: не вельмі густыя. - Катэгорыя шырыні пласцінак
- Катэгорыя шырыні пласцінак: шырокае.
Ножка і аснова
- Становішча ножкі
- Становішча ножкі: цэнтральны.
- Форма ножкі
- Форма ножкі: цыліндрычны.
- Аснова ножкі
- Аснова ножкі: клубнепадобны (нязначна).
- Колер ножкі
- Колер ножкі: белаватая.
у ніжняй частцы ножкі: Колер ножкі: карычнева-аліўкавы.
Колер ножкі: светла-крэмавы. - Покрыва паверхні ножкі
- Покрыва паверхні ножкі: лускаватая.
- Унутраная будова ножкі
- Унутраная будова ножкі: пусты ўнутры.
- Кансістэнцыя ножкі
- Кансістэнцыя ножкі: крохкі.
- Даўжыня ножкі
- Даўжыня ножкі: 70–150 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 7–15 mm.
- Вольва
- Вольва: наяўны.
Вольва: наяўны.
Вольва: наяўны.
Кольца
- Наяўнасць кольца
- Наяўнасць кольца: без кольца.
Пакрывала каля асновы
- Будова покрыва каля асновы ножкі
- Будова покрыва каля асновы ножкі: мяшкападобная.
Будова покрыва каля асновы ножкі: мяшкападобная.
Будова покрыва каля асновы ножкі: палосы (палосы размешчаныя кольцамі, у ніжняй частцы ножкі).
- Устойлівасць вольвы і пакрывала каля асновы да пашкоджання
- Устойлівасць вольвы і пакрывала каля асновы да пашкоджання: лёгка пашкоджваецца (элемент покрыва каля асновы ножкі: вольва).
- Устойлівасць мякаці ножкі да пералому або разрыву
- Устойлівасць мякаці ножкі да пералому або разрыву: крохкі.
- Каржакаватасць ножкі
- Каржакаватасць ножкі: стройны.
- Колер похвы і пакрывала ў аснове ножкі
- Колер похвы і пакрывала ў аснове ножкі: шэры (элемент покрыва каля асновы ножкі: вольва).
Колер похвы і пакрывала ў аснове ножкі: шэры (элемент покрыва каля асновы ножкі: вольва).
Мякаць
- Колер мякаці
- Колер мякаці: белы.
- Пах мякаці
- Пах мякаці: слабы.
Пах мякаці: адсутны. - Адценне смаку мякаці
- Адценне смаку мякаці: арэхавы.
- Характар смаку мякаці
- Характар смаку мякаці: мяккі.
- Наяўнасць адчувальнага смаку мякаці
- Наяўнасць адчувальнага смаку мякаці: неадчувальны.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лісцевы лес.
Месцапражыванне: хвойны лес.
Месцапражыванне: змешаны лес.
Месцапражыванне: хмызнякі. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: рассеяныя групы. - Частата знаходак
- Частата знаходак: рэдкі.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з ліпеня да кастрычніка.
- Арэал распаўсюджання
- Арэал распаўсюджання: пацверджана.
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
- Спажыванне ў сырым выглядзе
- У сырым выглядзе атрутны
Права
- Ахова
- У Польшчы від не падлягае відавой ахове.
- Гандаль
- У Польшчы від не дапушчаны да гандлю або вытворчасці грыбной прадукцыі.
З чым можна паблытаць
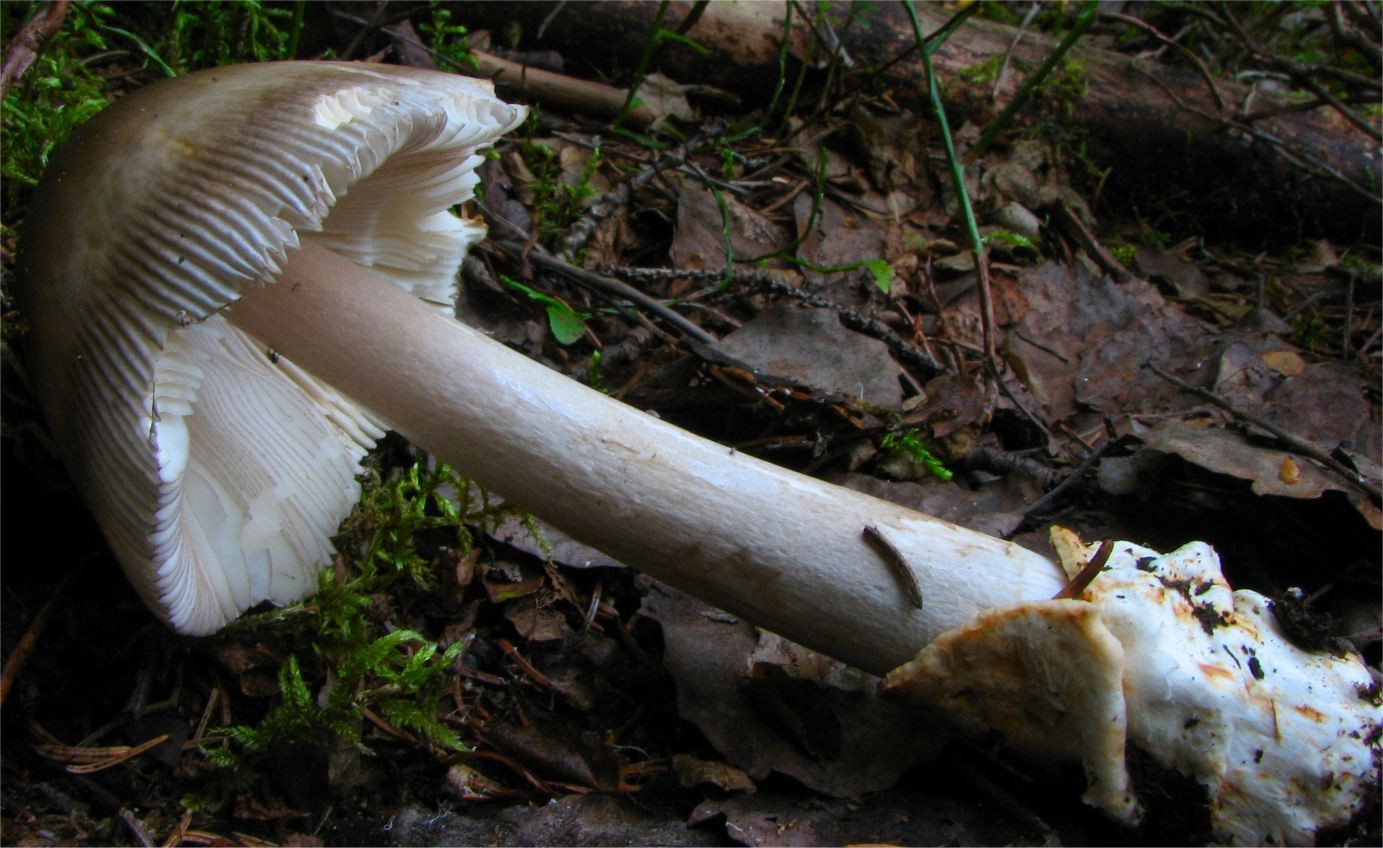
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Крыніца фотаздымка · CC BY-SA 3.0Amanita battarrae
Найважнейшыя адрозненні
Мухамор карычнева-аліўкавы (Amanita submembranacea) утварае шапкі, часцей пакрытыя буйнымі кавалкамі пакрывала, а яго вольва каля асновы ножкі выразна шэрае з унутранага боку.
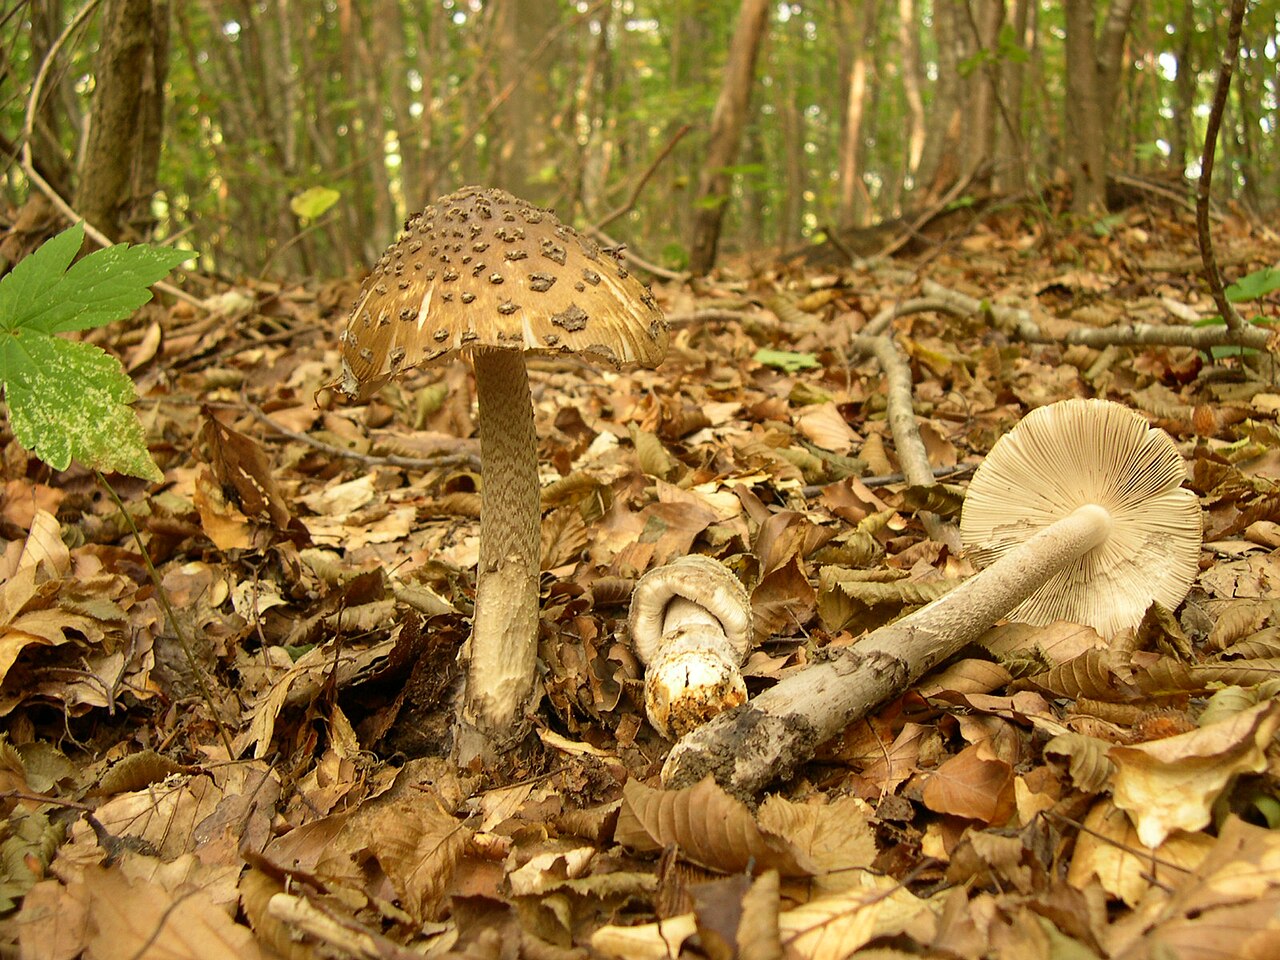
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Крыніца фотаздымка · CC BY-SA 3.0Amanita ceciliae
Найважнейшыя адрозненні
Мухамор карычнева-аліўкавы (Amanita submembranacea) адрозніваецца наяўнасцю буйных фрагментаў пакрывала на шапцы і вольвай, якая шэрае знутры, растучы пераважна ў горных лясах на кіслых глебах.
FAQ
Ці можна есці гэты грыб без адварвання?
Не, у сырым выглядзе ён выклікае цяжкае страўнікавае атручэнне.
Дзе часцей за ўсё сустракаецца гэты від?
Ён сустракаецца пераважна ў горных і перадгорных хвойных лясах Еўропы.
З якімі дрэвамі грыб утварае мікарызу?
Асноўнымі партнёрамі з'яўляюцца елка, піхта і горная хвоя.
Якога колеру шапка ў мухамора падперапончатага?
Колер вагаецца ад шэра-аліўкавага да цёмна-карычневага са светлымі плямамі.
Ці мае гэты від кольца на ножцы?
Не, як і іншыя паплаўкі, ён не мае кольца на ножцы.
Якая кансістэнцыя мякаці грыба?
Мякаць вельмі далікатная, тонкая, крохкая і вадзяністая.
У які перыяд года плоданасіць від?
Асноўны перыяд плоданашэння доўжыцца са жніўня да пачатку кастрычніка.
Ці шырока выкарыстоўваецца ён у кулінарыі?
Не, праз рэдкасць і ломкасць грыб амаль не збіраецца насельніцтвам.
Як выглядае похва ў аснове ножкі?
Похва свабодная, перапончатая, шэраватая і даволі ломкая.
Ці выкарыстоўваюць гэты грыб у рамёствах?
Лакальна ў гарах адвар ужывалі як прыродны таніроўшчык для драўніны.
Аматар
Назвы і гісторыя
- Obowiązująca nazwa krajowa
- muchomor brązowooliwkowy
- Obowiązująca nazwa taksonomiczna
- Amanita submembranacea (Bon) Gröger
- Pozostałe nazwy
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: белы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: шарападобны. Форма споры: амаль шарападобны. Форма споры: шарападобны. Форма споры: шарападобны. Форма споры: ізадыяметрычны (амаль, рэдка).
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 9,5–13 µm, шырыня 9–12 µm.
- Памеры
- Рэдкая форма споры (амаль раўнамерная форма) можа мець даўжыню ад 10 да 15 мікраметраў і шырыню ад 9 да 13 мікраметраў.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Дослед з фенолам
- Матэрыял
- Мякаць пладовага цела
- Рэактыў
- фенол
- Выкананне
- У апісанай спробе фенол ужываўся да пазначанага матэрыялу.
- Умовы і недахопы крыніцы
У крыніцы не пазначаны: падрыхтоўка ўзору, канцэнтрацыя фенолу, колькасць рэактыву, тэмпература, час счытвання, падрабязны спосаб нанясення рэактыву.
Назіранне / вынік
- Вынік з крыніцы
- У мякаці пасля прымянення фенолу атрымана брудна-чырванавата-бурая афарбоўка.
- Вынік з крыніцы
- У мякаці пасля прымянення фенолу атрымана вінна-ружовая афарбоўка.
Экалогія і распаўсюджанне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
- Урадлівасць глебы
- Урадлівасць глебы: урадлівая.
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: дуб.
Лісцевыя дрэвы ў наваколлі: бук.
Лісцевыя дрэвы ў наваколлі: бяроза.
Лісцевыя дрэвы ў наваколлі: вольха.
Лісцевыя дрэвы ў наваколлі: ліпа.
Лісцевыя дрэвы ў наваколлі: граб. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: елка.
Хвойныя дрэвы ў наваколлі: піхта. - Кусты ў наваколлі
- Кусты ў наваколлі: Pinus mugo.
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Abies (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Betula (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Larix (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Picea (агульны пералік партнёраў). - Тып жыўлення
- Тып жыўлення: эктамікарызны.
Некулінарнае прымяненне
З прычыны вузкага горнага арэалу і нізкай шчыльнасці папуляцый гэты від не меў шырокага практычнага выкарыстання ў побыце. У традыцыйных альпійскіх рамёствах існавала лакальная практыка дадання адвараў старых пладовых цел у склад раслінных прасычэнняў для апрацоўкі драўляных паверхняў, што надавала ім цёмны земляны адценне.
У сучаснасці грыб знаходзіць выкарыстанне выключна ў сферы батанічнай ілюстрацыі, экалагічнай асветы і стварэння эталонных мікалагічных гербарыяў горных біятопаў. Адбіткі споравых парашкоў на паперы часам выкарыстоўваюцца мастакамі-натуралістамі ў экалагічнай графіцы і прыродазнаўчых выставах.
Гісторыя і культура
Від быў выдзелены і навукова апісаны ў дваццатым стагоддзі, таму ён не паспеў абрасці багатай старажытнай міфалогіяй. Тым не менш у альпійскіх рэгіёнах Швейцарыі, Аўстрыі і Паўночнай Італіі мясцовыя жыхары даўно адрознівалі яго як асаблівы тып горнага ляснога паплаўка, які расце вышэй за звычайныя віды.
У навукова-гістарычным плане гэты грыб доўгі час служыў аб'ектам дыскусій сярод еўрапейскіх міколагаў адносна меж зменлівасці пакрывала і таксанаміі бязбондавых мухамораў. У мясцовых горных супольнасцях ён часта асацыюецца з першароднымі хвойнымі лясамі высакагор'я і разглядаецца краязнаўцамі як індыкатар некранутых прыродных ландшафтаў.
Ядомасць і бяспека
Як і іншыя прадстаўнікі гэтай секцыі, грыб лічыцца ўмоўна-ядомым, але патрабуе няўхільнай і папярэдняй тэрмічнай апрацоўкі. Сырая мякаць змяшчае тэрмаадчувальныя таксічныя кампаненты, здольныя правакаваць вострыя гастраэнтэрычныя з'явы. Абавязковай умовай бяспечнага ўжывання з'яўляецца поўнае адварванне з выдаленнем адвару перад далейшым гатаваннем.
Смак прыгатаванага грыба мяккі, са слабымі ляснымі ноткамі, але мякаць вельмі тонкая, вадзяністая і хутка разварваецца. Праз рэдкасць віду і яго пераважнае пражыванне ў горных ландшафтах ён не мае масавага кулінарнага значэння ні ў адной краіне свету. Большасць грыбнікоў у Альпах і Карпатах пазбягаюць яго збору, каб не ствараць рызыкі памылкі пры кантакце з небяспечнымі відамі мухамораў.
Асяроддзе пражывання і распаўсюджанне
Гэты від мае пераважна еўрапейскі арэал з выразнай прымеркаванасцю да перадгорных, горных і барэальных рэгіёнаў. Расце ў хвойных і мяшаных лясах на вялікіх вышынях, дзе ўступае ў мікарызныя адносіны з елкай звычайнай, піхтай і рознымі відамі хвоі, значна радзей — з карлікавай бярозай. Аддае перавагу кіслым, сілікатным і бедным пажыўнымі рэчывамі глебам, часта на камяністых схілах або сярод суцэльнага мохавага покрыва.
Сезон плоданашэння звычайна карацейшы, чым у раўнінных суродзічаў. Першыя пладовыя целы фармуюцца ў канцы ліпеня або пачатку жніўня, а заканчваецца сезон у верасні ці ў пачатку кастрычніка, што абумоўлена раннім надыходам халадоў у горных біятопах. У вільготныя сезоны пры ўстойлівым туманным надвор'і можа з'яўляцца лакальнымі групамі, але ў цэлым застаецца нешматлікім відам.
Крыніцы
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: зыходная ўмова cuisson; адсутнічае спецыфічны валідаваны пратакол часу і тэмпературы
- Ядомасць
- Ядомы — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; дыдактычная картка, не выпрабаванне бяспекі
- Спажыванне ў сырым выглядзе
- Атрутны
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: аўтар крыніцы звязвае адсутнасць тэрмічнай апрацоўкі са шкоднымі гемалітычнымі наступствамі. Не ўсталёўвае праверанага бяспечнага пратакола прыгатавання.
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Amanita submembranacea (Bon) Gröger
Навуковыя назвы і таксанамія
Amanita submembranacea (Bon) Gröger належыць да сямейства мухаморавых (Amanitaceae) і секцыі Vaginatae. Цяперашняя камбінацыя апублікавана ў 1979 годзе на аснове базаніма Amanitopsis submembranacea Bon 1975 года.
Навуковыя назвы і таксанамія
У гістарычнай мікалагічнай літаратуры з гэтым таксонам часам звязваецца неапублікаваная назва Amanita subalpina M. M. Moser ined.
Абсяг таксона і абмежаванні вызначэння
Сучасная рэвізія еўрапейскай секцыі Vaginatae пацвярджае відавую самастойнасць A. submembranacea на аснове супастаўлення мікраскапічных прыкмет вольвы з аналізам паслядоўнасцей nrDNA ITS, nrDNA LSU, RPB1 і TEF1-α.
Экалогія і распаўсюджанне
- Частата знаходак
- Польшча: Частата знаходак: рэдкі. [28]
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
Пражкі
Астатнія лабараторныя прыкметы
- Вяршыня клетак краю пласцінкі
- Вяршыня клетак краю пласцінкі: галоўчаты. [25]
- Перацяжкі клетак краю пласцінкі
- Перацяжкі клетак краю пласцінкі: звужанае. [25]
- Ход клетак краю пласцінкі
- Ход клетак краю пласцінкі: звілісты. [25]
- Даўжыня клеткі краю пласцінкі
- Даўжыня клеткі краю пласцінкі: 20–40 µm. [37]
Даўжыня клеткі краю пласцінкі: 20–30 µm. [25] - Чляністасць клетак краю пласцінкі
- Чляністасць клетак краю пласцінкі: членістыя. [25]
- Форма іншых клетак ляза пласцінкі
- Форма іншых клетак ляза пласцінкі: булавападобны (шырокі). [37]
Форма іншых клетак ляза пласцінкі: шарападобны на ножцы (у частцы клетак). [25]
Форма іншых клетак ляза пласцінкі: падобны да членіка апунцыі. [25]
Форма іншых клетак ляза пласцінкі: малаткападобны. [25] - Рэгулярнасць групы клетак краю пласцінкі
- Рэгулярнасць групы клетак краю пласцінкі: няправільны (часта). [25]
- Шырыня клеткі краю пласцінкі
- Шырыня клеткі краю пласцінкі: 16–30 µm. [37]
Шырыня клеткі краю пласцінкі: 10–15 µm. [25] - Жэлацінізаванасць падгіменія
- Жэлацінізаванасць падгіменія: жэлацінізаваная (слаба жэлацінізаваныя, часам, на краі пласцінкі). [25]
- Будова субгіменія
- Будова субгіменія: звілістае. [25]
Будова субгіменія: членістае (у базідыяфорнай зоне). [25]
Будова субгіменія: субклетачнае (у базідыяфорнай зоне). [25] - Тыпы клетак у агульным пакрывале
- Тыпы клетак у агульным пакрывале: сферацысты (часткова). [25]
Тыпы клетак у агульным пакрывале: ніткападобныя гіфы. [25]
Тыпы клетак у агульным пакрывале: ніткападобныя гіфы (перавага, вонкавая паверхня покрыва, каля асновы ножкі). [33]
Тыпы клетак у агульным пакрывале: сферацысты (каля асновы ножкі, доля расце, у кірунку ўглыб). [33] - Дыяметр шарападобных клетак агульнага пакрывала
- Дыяметр шарападобных клетак агульнага пакрывала: 20–70 µm (сферацыста). [25]
- Форма клеткі агульнага пакрывала
- Форма клеткі агульнага пакрывала: шарападобны. [25]
- Шырыня гіфы агульнага пакрывала
- Шырыня гіфы агульнага пакрывала: 3–15 µm. [25]
Скурка шапкі
- Размяшчэнне гіфаў скуркі капялюшыка
- Размяшчэнне гіфаў скуркі капялюшыка: Паралельныя. [31]
Размяшчэнне гіфаў скуркі капялюшыка: Паралельныя (гіпакутыс, больш-менш). [25] - Форма элементаў скуркі капялюшыка
- Форма элементаў скуркі капялюшыка: цыліндрычны. [37]
- Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: 10–15 µm (гіпакутыс). [25]
Шырыня элементаў скуркі капялюшыка: 3–6 µm. [31]
Шырыня элементаў скуркі капялюшыка: 3–6 µm (эпікутыс). [25] - Зменлівасць жэлацінізаванасці скуркі шапкі
- Зменлівасць жэлацінізаванасці скуркі шапкі: зменлівая. [37]
Зменлівасць жэлацінізаванасці скуркі шапкі: зменлівая (эпікутыс). [25] - Размяшчэнне гіф скуркі ў гелепадобным рэчыве
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны (ступень жэлацінізацыі зменлівая, эпікутыс). [25]
Споры
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: гіялінавы. [31]
Колер спор пад мікраскопам: жоўты (іржавая, слаба выяўленая афарбоўка). [25] - Крынічная ацэнка рэакцыі эндаспорыя ў ёдзе
- Крынічная ацэнка рэакцыі эндаспорыя ў ёдзе: псеўдаамілоідная (слаба, вынік пастаўлены пад сумнеў у крыніцы). [25]
- Размяшчэнне кроплі споры
- Размяшчэнне кроплі споры: цэнтральны. [25]
- Кроплі ўнутры споры
- Кроплі ўнутры споры: наяўны (вялікія кроплі). [25]
Трама гіменафора
Матэрыял і метады даследаванняў
Апісанне прымет — крыніца і абсяг
Матэрыял: Агульнае аўтарскае апісанне Lyon 1: Odeur faible, voire nulle.
Абсяг прачытання: Дакументаванае назіранне.
Абмежаванні: Дыдактычнае апісанне без нумара экзэмпляра; неадчувальны пах — гэта іншы аспект, чым слабая інтэнсіўнасць.
Апісанне прымет — крыніца і абсяг
Матэрыял: Даследаваны польскі матэрыял у апісанні Ronikier 2012, смак mild, пах none.
Абсяг прачытання: Дакументаванае назіранне.
Абмежаванні: Апісанне аўтара; не інструкцыя для смакавых проб сырога грыба.
Проба з хімічным рэактывам — матэрыял і абмежаванні
Матэрыял: Мякаць пладовых цел у апісанні Bon 1975, абзац Chair; фенол, без указання канцэнтрацыі, тэмпературы і часу счытвання.
Абсяг прачытання: Дакументаванае назіранне.
Абмежаванні: Не дапісана храналагічная змена афарбоўкі ці пратакол з іншых відаў. Арыгінальнае вызначэнне афарбоўкі і ўласны кваліфікатар застаюцца асобнымі.
Даследаванне складу і актыўнасці — матэрыял і абмежаванні
Матэрыял: Пладовыя целы A. submembranacea, унутрыклеткавае срэбра; дакладны зборны матэрыял апісаны ў абстракце.
Абсяг прачытання: Абстракт.
Даследаванне малекул — Borovička і інш. (2010)
Матэрыял: Комплексы срэбра і іх пептыдны ліганд з пладовых цел A. submembranacea; малекулярны падзел фракцый у абстракце.
Абсяг чытання: Абстракт.
Агульныя абмежаванні прачытання крыніцы
Абмежаванні: Прачытаны ўвесь абстракт першаснай публікацыі праз індэкс EuropePMC. Поўны артыкул не чытаўся; адсутнічаюць N і падрабязнасці па асобных экзэмплярах. Агульны дыяпазон 304–692 мг/кг для секцыі Vaginatae не адносіўся да гэтага віду. Гэта не доказ укаранення біярэмедыяцыі або лячэбнага прымянення. Метады, пералічаныя ў абстракце: эксклюзійная храматаграфія, флуараметрыя сульфгідрыльных груп, RP-HPLC і палепшаны поліакрыламідны электрафарэз. Неўказаныя параметры не дапаўняліся. Ідэнтыфікацыю віду прывялі аўтары (2010). Метад ідэнтыфікацыі і дакументальны ўзор недаступныя ў прачытаным абстракце; паўторнае вызначэнне матэрыялу не праводзілася.
Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- Вынікі, пададзеныя ў крыніцах — Колькасць спор на базідыі
- Liczba zarodników na jednej podstawce wynosi 4. [25] [37]
- Вынікі, пададзеныя ў крыніцах — Дыяметр споры
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [37]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [25]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [31]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [31]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [31]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [25]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [25]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [25]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [25]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [25]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [25]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [25]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [25]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [25]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [25]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [25]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [25]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [25]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [25]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [25]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [25]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [25]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [25]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [25]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [25]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [25]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [25]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [25]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [37]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [37]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [37]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [37]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [37]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [37]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [37]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [37]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [37]
Kształt zarodnika — zapis źródłowy: „globose” [37]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [37]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [33]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [33]
Назвы і абсяг таксона
Асноўная назва: Мухамор карычнева-аліўкавы (Muchomor brązowooliwkowy) — гэта назва, прапанаваная Ваяводам (Wojewoda) у польскім спісе 2003 г., с. 50; пазнейшы польскі палявы даклад выкарыстоўвае тую ж назву. Гэта не назва, устаноўленая нарматыўным актам. Атлас Ekologia.pl падае таксама mglejarkę brązowooliwkową і gryzetkę brązowooliwkową; яны захаваны як альтэрнатыўныя назвы атласнага паходжання. Не знойдзена незалежнага пацвярджэння даўнейшых пазначэнняў szaropochwowy і mglejarka szaropochwowa.
Базанім і сінанімія: Бон (Bon) апісаў Amanitopsis submembranacea у 1975 г., с. 176, на падставе матэрыялу з Францыі; тып Fontanet,17.09.1974,нумар 740917. Актуальная камбінацыя ў рэестры — Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum падае таксама var. griseoargentata Contu 1986 як сінонім. Гэта меркаванне рэестра; тып гэтай адновы не даследаваўся. A. subalpina M. M. Moser ined. застаецца гістарычнай неапублікаванай назвай. Колішняя var. bispora, цяпер A. reidiana, як і параўноўваная A. olivaceogrisea, не ўключаны ў даныя віду.
Малекулярныя даныя: Варга і інш. (2024), табліца 1, падаюць уласны экзэмпляр DB-2018-07-31-1(AD25), Trafoi, Паўднёвы Ціроль, Італія, з паслядоўнасцямі PP375774,PP375269,PP358527,PP273684. Астатнія радкі ахопліваюць Эстонію, Германію, Бельгію, Францыю і Аўстрыю і адсылаюць да больш ранніх прац. Гэтыя запісы не разглядаліся як генетычная верыфікацыя польскіх экзэмпляраў або ўласны прадукт.
Польскія месцазнаходжанні, біятоп і сезон
Гербарны матэрыял: Ронікер (Ronikier) апісала пладовыя целы з масіву Сарня Скала (Sarnia Skała): KRAM F-39947 (20.06.2000),F-50021 (04.07.2000),F-54314 (03.07.2002),F-54315 (20.08.2002),F-54316 (16.08.2003), з вышыні 910–1160 м, на глебе, у букняку, піхтава-елавым і елавым лесе. Мал. 9 звязаны з F-39947. Даклад Хахулы і інш. (Chachuła i in.) дакументуе ў 2018 г. пладовае цела каля горнай хвоі,1665 м,11 кастрычніка. Гэта апублікаваныя марфалагічныя вызначэнні; паўторнае іх вызначэнне або даследаванні ДНК тут не праводзіліся.
Атласны сезон і назіранні: Даступны польскі атлас Ekologia.pl падае ліпень або жнівень–кастрычнік. У радку сезона захаваны поўны дыяпазон ліпень–кастрычнік са спасылкай на атлас; гэта папулярнае выданне без уласнай феналагічнай крывой. Раннія чэрвеньскія зборы з польскай манаграфіі і GRej застаюцца асобнымі назіраннямі. З іх не выводзіўся звычайны сезон або яго пік. Французскі чэрвень–лістапад і брытанскія тэрміны не падстаўляліся замест польскага сезона.
Арэал і рэдкасць: Ваявода адзначыў Бабю Гуру (Babia Góra),1370–1670 м, паводле Буякевіч (Bujakiewicz) 1993. Хахула і інш. (2019) дакументуюць уласную знаходку і цытуюць сем далейшых рэгіёнаў Польшчы. Іх азначэнне rzadko notowany (рэдка адзначаецца) захавана як ацэнка з гэтай працы, а не сучаснае вымярэнне колькасці па ўсёй краіне. У GRej адрозніваецца пацверджаны нумар эксіката ад дэкларацыі будучай перадачы матэрыялу. Сам запіс у GRej не з'яўляецца статусам юрыдычнай аховы.
Будова і метады мікраскапічных даследаванняў
Польскі матэрыял і метады: Апісанне Ронікер грунтуецца на матэрыялах з даследаванай тэрыторыі, якія захоўваюцца ў KRAM і ZAMU. Агульныя метады ўключалі стэрэаскапічны мікраскоп Nikon SMZ 1500 і Nikon Eclipse E600, стандартнае святло або кантраст Намарскага; большасць вымярэнняў выконвалася ў 5% KOH, часам у рэактыве Мельцэра або конга чырвоным. Аўтарка не пазначае асяроддзе кожнага вымярэння для гэтага віду і колькасць спроб. 5% KOH не лічыўся ўмовай кожнага ліку. Памеры структур звычайна падаваліся як даўжыня × найбольшая шырыня.
Вынікі і параўнальнасць: Ронікер паведамляе пра шарападобныя і гладкія споры, дыяметр 10–12 µm, адсутнасць амілоіднасці, базідыі 50–57 × 14–15 µm па 4 споры. Бон апісвае базідыі 55–70 × 15–20 µm па 4 споры і дыяметр спор (9)–11–13–(14) µm; рэдкія формы маюць 10–15 × 9–13 µm. Kibby падае 9,5–13 × 9–12 µm. Дыяметр не перапісваўся як дзве восі, а рэдкія формы паводле Бона не дадаваліся да безумоўнага агульнага вымярэння. Зыходныя дыяпазоны і крайнія межы застаюцца раздзеленымі.
Клеткі канта пласцінак і вольва: У польскім матэрыяле клеткі канта маюць 20–40 × 16–30 µm і з'яўляюцца шырокабулавападобнымі. Бон апісвае частку клетак як шарападобна-ножкавыя 20–30 × 10–15 µm, а астатнія — як дэфармаваныя, членістыя, выгнутыя, звужаныя, галаўчатыя або молатападобныя. Яны не атаясамліваліся аўтаматычна з цысцідамі. Пакрывала паводле Бона змяшчае слаба звязаныя шарападобныя клеткі 20–70 µm і сплеценыя гіфы 3–15 µm. У Kibby знешні бок вольвы пераважна ніткападобны, а ў бок унутранай часткі клеткі набракаюць да сферацыст. Розныя пласты і матэрыялы не аб'ядноўваліся ў адзін безумоўны вынік.
Скурка, трама і спражкі: Ронікер вызначае скурку як (ixo)cutis з цыліндрычных гіф і адзначае адсутнасць спражак. Бон апісвае жэлацінізаваную epicutis са свабоднымі канцамі, роўнымі або булавападобнымі, шырынёй 3–6 µm, і ніжэйшы пласт з іншым размяшчэннем і пігментам; hypocutis мае гіфы 10–15 µm, сярод больш вузкіх 3–7 µm. Трама пласцінак білатэральная, з адрозненнем звычайных гіф, базальных элементаў і патаўшчэнняў. Агульная адсутнасць спражак не пераўтваралася ў дапушчэнне аб даследаванні кожнай асновы клеткі. Grenoble падае споры гіялінавымі; асяроддзе гэтай агульнай ацэнкі застаецца непазначаным, асобна ад подпісаў да фотаздымкаў у вадзе.
Хімічныя рэакцыі: Бон апісвае пасля фенолу брудна-чырвона-карычневую да вінна-ружовай афарбоўку, адрозніваючы яе ад інтэнсіўнага колеру чорных парэчак. Споры ён апісвае як неамілоідныя, хоць у ёдзе заўважае жаўтлява-рудаватаю зону эндаспоры і ставіць пытанне аб слабой псеўдаамілоіднасці. Знак пытання не разглядаўся як станоўчы вынік і не атаясамліваўся з класічнай амілоіднасцю ўсёй споры. Для адмоўнага выніку польскага матэрыялу канцэнтрацыя рэактыву, тэмпература і час не дадумваліся.
Ядомасць і пераканаўчасць таксікалагічных доказаў
Ацэнкі аўтараў: Grzyby.pl прыводзіць ацэнку «ядомы», а дыдактычная картка Lyon 1 — «умоўна ядомы». Lyon прыпісвае групе Amanitopsis гемалізіны, гемалітычныя сімптомы і неабходнасць тэрмічнай апрацоўкі, але не прыводзіць пры гэтым тэзісе даследавання спецыфічнага таксіну гэтага віду або апісання канкрэтнай серыі пацыентаў. Гэта не валідаваны пратакол бяспекі A. submembranacea. Захавана адрозненне паміж ацэнкай аўтара, папярэджаннем для групы і вынікам даследавання віду.
Справаздача ANSES і абмежаванні: ANSES абагульніла французскія паведамленні пра атручванні з 2017 г., выключыўшы толькі выпадкі з нулявой сувяззю з уздзеяннем. Справаздача называе A. phalloides і A. submembranacea таксонамі, апазнанымі па фотаздымках сярод чатырох выпадкаў цяжкіх атручванняў з аматаксiнавай карцінай. Яна не размяжоўвае колькасць выпадкаў паміж абодвума відамі, не дае індывідуальнай дакументацыі, аналізаў таксінаў пладовых цел або даных, якія выключаюць спажыванне некалькіх відаў грыбоў разам. Гэта не дазваляе прыпісаць гэтаму віду ўсе 25 выпадкі, дзве смерці або давесці наяўнасць аматаксiнаў у яго правільна вызначаных пладовых целах. Згадка не была прапушчана, але ёй не надавалася большая прычынна-выніковая сіла, чым дакументуе публікацыя.
Стан агляду: У правераным матэрыяле не выяўлена спецыфічнага аналізу гемалізінаў або аматаксiнаў гэтага віду, як і поўнай індывідуальнай клінічнай дакументацыі, якая б вырашала вышэйзгаданыя разыходжанні. Гэта абмежаванне агляду, а не доказ адсутнасці таксінаў або даследаванняў. Запіс «ядомы пасля поўнай апрацоўкі» пазначаны як ацэнка аўтара дыдактычнай карткі. Ён не пераводзіўся ні ў клінічны вынік, ні ў катэгорыю смяротна ядавітых.
Акумуляцыя срэбра і іншыя прымяненні
Вынік даследавання віду: Баровічка і інш. (Borovička i in.) (2010) аналізавалі комплексы срэбра ў пладовых целах A. submembranacea з дапамогай размеркавальнай храматаграфіі, вызначэння тыёлавых лігандаў і электрафарэзу. Увесь прачытаны рэферат паведамляе, што амаль усё даследаванае срэбра знаходзілася ўнутры клетак, у асноўным у комплексах 7 kDa і ў меншай фракцыі 3,3 kDa; у выдзеленых комплексах выяўлены адзіны тыёлавы пептыд каля 3 kDa. Гэта сведчанне ўдзелу металатыянеіну, а не поўная ідэнтыфікацыя механізму ў кожным экзэмпляры.
Узровень вывучэння і ахоп: Быў прачытаны поўны рэферат першаснай публікацыі; поўны тэкст з табліцамі, нумарамі экзэмпляраў і метадамі не быў атрыманы. Дыяпазон 304–692 мг/кг адносіцца ў рэфераце да Amanita spp. секцыі Vaginatae, таму яго межы не прыпісваліся асобнаму віду. Адсутнасць глутатыёну і фітахелацінаў адносіцца да даследаваных выдзеленых комплексаў, без сцвярджэння аб іх біялагічнай адсутнасці ва ўсяго віду. Вынікі эксперыменту Асобавай і інш. (Osobová i in.) (2011) на A. strobiliformis сюды не пераносіліся.
Прымяненне і патэнцыял: Даследаванне дакументуе акумуляцыю і звязванне металу. Яно не пацвярджае прымянення гэтага віду для ачысткі навакольнага асяроддзя, фармацэўтычнай вытворчасці, біялагічна актыўных дабавак або здабычы срэбра. Асобныя пошукі тэхнічных, зёлкавых, лячэбных, фарбавальных і кулінарных (у якасці прыправы) ужыванняў не далі ў правераным аб'ёме першакрыніцы, якая пацвярджае такую практыку. Гэта не азначае доказу яе неіснавання. Адсутнае прымяненне не замянялася выкарыстаннем іншых мухамораў.
Крынічная дакументацыя
Высновы крыніцы: Tulloss пералічвае пры Amanita submembranacea дрэвы Abies, Betula, Larix і Picea, у тым ліку прыклады Picea abies, Abies alba і Larix decidua. Звяртае ўвагу, што частка калекцый з Англіі, Нарвегіі і Шатландыі, якія раней вызначаліся як A. submembranacea, аказалася A. reidiana. Гэта засцярога адносна ідэнтыфікацыі гэтых калекцый; яна не пацвярджае іх прысутнасці як A. submembranacea sensu stricto.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Polskie okazy KRAM F-39947,F-50021,F-54314,F-54315,F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Ахоп прачытанага: Дакументаванае назіранне.
Дата прагляду: 18.10.2026.
Абмежаванні: Без уласнага паўторнага вызначэння або генатыпавання. Даты збораў не вызначаюць межаў сезона.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Абсяг чытання: Фрагменты крыніц.
Прачытаны фрагмент крыніцы; поўны тэкст і метады не правяраліся.
Дата прагляду: 21.10.2026.
Абмежаванні: Крынічнае вызначэнне і абсяг паняцця захаваны. Не дэкларавалася новае даследаванне ўзораў або чытанне ўсіх публікацый, цытаваных крыніцай.
Абсяг распрацоўкі
Патрабаваныя праверкі ўрэгуляваны.
Прававая аснова і абсяг ацэнкі
Аналітычныя вынікі
Склад і лабараторная актыўнасць
- Вынік выяўлення кампанента ў матэрыяле
- Вынік выяўлення кампанента ў матэрыяле: выяўлена (Ag, прэпарат з пладовых цел, ідэнтыфікаваны ў крыніцы, унутрыклетачна). [7]
- Малекулярная маса ліганда, які звязвае метал
- Малекулярная маса ліганда, які звязвае метал: 3 kDa (Ag, тыёлавы пептыд, гіпатэтычная ідэнтычнасць, гіпотэза: металатыянеін, ліганд, які звязвае срэбра, прыведзенае значэнне). [7]
- Малекулярная маса комплексу металу
- Малекулярная маса комплексу металу: 7 kDa (Ag, комплекс металу, унутрыклетачна, асноўны кампанент, асноўная фракцыя комплексу срэбра, прыведзенае значэнне). [7]
Малекулярная маса комплексу металу: 3,3 kDa (Ag, комплекс металу, унутрыклетачна, другасны кампанент, другасная фракцыя комплексу срэбра, прыведзенае значэнне). [7]
Найважнейшыя рэчывы і іх дзеянне
Найважнейшыя рэчывы і іх дзеянне
У пладовых целах з месцазнаходжанняў з павышаным утрыманнем металаў даследавалі ўнутрыклеткавае звязванне і затрыманне срэбра; гэты элемент звязваецца пераважна ў пептыдных комплексах з масай 7 кДа і 3,3 кДа, з імаверным удзелам металатыянеінаў.
Найважнейшыя рэчывы і іх дзеянне
У мухаморах з секцыі Vaginatae з забруджаных тэрыторый адзначаліся канцэнтрацыі срэбра, якія дасягаюць 304–692 мг/кг.
Найважнейшыя рэчывы і іх дзеянне
Спажыванне сырых мухамораў з гэтай групы выклікае гемалітычныя атручэнні, якія выяўляюцца млоснасцю, ванітамі, распадам чырвоных крывяных цельцаў, крывамоўем і рызыкай пашкоджання нырак.
Экалагічныя даследаванні
Крынічная дакументацыя
Высновы крыніцы: NDFF апісвае адзіную нідэрландскую знаходку Amanita submembranacea пад грабам у алеі, на багатай пажыўнымі рэчывамі глебе. За межамі Нідэрландаў пералічвае месцазнаходжанні пад хвойнымі і лісцевымі дрэвамі, асабліва на кіслых глебах. Апісанне аднаго нідэрландскага месца захавана асобна ад больш шырокай экалогіі; знаходжанне пад грабам не становіцца доказам мікарызы з гэтым дрэвам ці агульнай перавагі ўрадлівых глеб.
Асяроддзе пражывання і распаўсюджанне
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Утварэнне пладовых цел | Крыніцы |
|---|---|---|---|
| Польшча | Малапольскае ваяводства | VII–X |
|
Крыніцы
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (także [31])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Borovička i in. 2010 — wyniki abstraktu, odczyt 2026-10-19
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (także [33])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (także [27])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)