
Jedlý

Vyžaduje úpravu

Za surova jedovatý

Nastavte polohu, aby sa zobrazili údaje pre váš región.


Muchotrávka pošvatá sivohnedá (Amanita submembranacea) je horský a podhorský druh z okruhu bezprsteňových muchotrávok. Vyznačuje sa olivovohnedým až sivohnedým klobúkom s ryhovaným okrajom, na ktorom často zostávajú sivasté útržky plachtičky. Na spodku hlúbika má krehkú, sivastú a ľahko sa trhajúcu pošvu. Je mykoríznym druhom ihličnatých a zmiešaných horských porastov. Po dôkladnom tepelnom spracovaní je jedlá, no vyžaduje zvýšenú pozornosť.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
Klobúk
- Tvar klobúka
- Tvar klobúka: zvonkovitý.
pri mladých plodniciach: Tvar klobúka: vajcovitý.
Tvar klobúka: vypuklý.
Tvar klobúka: plochý. - Reliéf povrchu klobúka
- Reliéf povrchu klobúka: hladký.
- Lesk povrchu klobúka
- Lesk povrchu klobúka: lesklý.
- Lepkavosť a slizkosť klobúka
- Lepkavosť a slizkosť klobúka: lepkavý (mierne).
- Farba klobúka
- Farba klobúka: Olivovohnedá.
Farba klobúka: žltohnedý.
Farba klobúka: hnedoolivový. - Reliéf povrchu okraja klobúka
- Reliéf povrchu okraja klobúka: brázditý.
- Priemer klobúka
- Priemer klobúka je 50–100 mm.
- Stred klobúka
- Stred klobúka: s výrazným hrboľom (malý hrboľ, plochý hrbolček).
- Rozsah ryhovania okraja klobúka
- Rozsah ryhovania okraja klobúka: 0,25–0,5 (v pomere k polomeru klobúka).
- Prítomnosť zvyškov plachtičky na klobúku
- Prítomnosť zvyškov plachtičky na klobúku: neprítomný.
Prítomnosť zvyškov plachtičky na klobúku: prítomný. - Farba zvyškov plachtičky na klobúku
- Farba zvyškov plachtičky na klobúku: sivastý.
- Podoba zvyškov plachtičky na klobúku
- Podoba zvyškov plachtičky na klobúku: útržky.
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: lupene.
Lupene pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene).
- Farba hymenoforu
- Farba hymenoforu: biely.
Farba hymenoforu: krémový. - Makroskopická stavba voľného ostria lupeňov
- Makroskopická stavba voľného ostria lupeňov: brvité.
Makroskopická stavba voľného ostria lupeňov: vločkovité (mierne). - Rozostup lupeňov
- Rozostup lupeňov: husto usporiadané.
Rozostup lupeňov: nie veľmi husté. - Šírková trieda lupeňov
- Šírková trieda lupeňov: široké.
Hlúbik a báza
- Poloha hlúbika
- Poloha hlúbika: stredový.
- Tvar hlúbika
- Tvar hlúbika: valcovitý.
- Báza hlúbika
- Báza hlúbika: hľuzovitý (mierne).
- Farba hlúbika
- Farba hlúbika: belavá.
v dolnej časti hlúbika: Farba hlúbika: hnedoolivový.
Farba hlúbika: svetlo krémový. - Pokryv povrchu hlúbika
- Pokryv povrchu hlúbika: šupinatá.
- Vnútro hlúbika
- Vnútro hlúbika: dutý.
- Konzistencia hlúbika
- Konzistencia hlúbika: krehký.
- Dĺžka hlúbika
- Dĺžka hlúbika: 70–150 mm.
- Priemer hlúbika
- Priemer hlúbika: 7–15 mm.
- Pošva
- Pošva: prítomný.
Pošva: prítomný.
Pošva: prítomný.
Prsteň
- Prítomnosť prsteňa
- Prítomnosť prsteňa: bez prsteňa.
Plachta na báze
- Stavba vela pri báze hlúbika
- Stavba vela pri báze hlúbika: vakovitá.
Stavba vela pri báze hlúbika: vakovitá.
Stavba vela pri báze hlúbika: pruhy (pásy usporiadané do prstencov, v dolnej časti hlúbika).
- Odolnosť pošvy a plachtičky na báze proti poškodeniu
- Odolnosť pošvy a plachtičky na báze proti poškodeniu: ľahko sa poškodí (časť vela pri báze hlúbika: pošva).
- Odolnosť dužiny hlúbika proti zlomeniu alebo roztrhnutiu
- Odolnosť dužiny hlúbika proti zlomeniu alebo roztrhnutiu: krehký.
- Robustnosť hlúbika
- Robustnosť hlúbika: štíhly.
- Farba pošvy a plachtičky na báze hlúbika
- Farba pošvy a plachtičky na báze hlúbika: sivý (časť vela pri báze hlúbika: pošva).
Farba pošvy a plachtičky na báze hlúbika: sivý (časť vela pri báze hlúbika: pošva).
Dužina
- Farba dužiny
- Farba dužiny: biely.
- Vôňa dužiny
- Vôňa dužiny: slabý.
Vôňa dužiny: neprítomný. - Chuťový tón dužiny
- Chuťový tón dužiny: orechový.
- Charakter chuti dužiny
- Charakter chuti dužiny: mierny.
- Prítomnosť vnímateľnej chuti dužiny
- Prítomnosť vnímateľnej chuti dužiny: nepostrehnuteľný.
Kde a kedy rastie
- Stanovište
- Stanovište: listnatý les.
Stanovište: ihličnatý les.
Stanovište: zmiešaný les.
Stanovište: kroviny. - Substrát
- Substrát: pôda.
- Spôsob rastu plodníc
- Spôsob rastu plodníc: jednotlivo.
Spôsob rastu plodníc: roztrúsené skupiny. - Frekvencia výskytu
- Frekvencia výskytu: vzácny.
- Obdobie rastu
- Plodnice sa objavujú od júla do októbra.
- Oblasť výskytu
- Oblasť výskytu: potvrdený.
Jedlosť a kuchyňa
- Jedlosť
- Jedlý
- Vyžadovaná úprava
- Vyžaduje úpravu
- Konzumácia za surova
- Za surova jedovatý
Právo
- Ochrana
- V Poľsku nepodlieha druhovej ochrane.
- Predaj
- V Poľsku nie je povolený na predaj ani na výrobu hubových výrobkov.
S čím možno zameniť
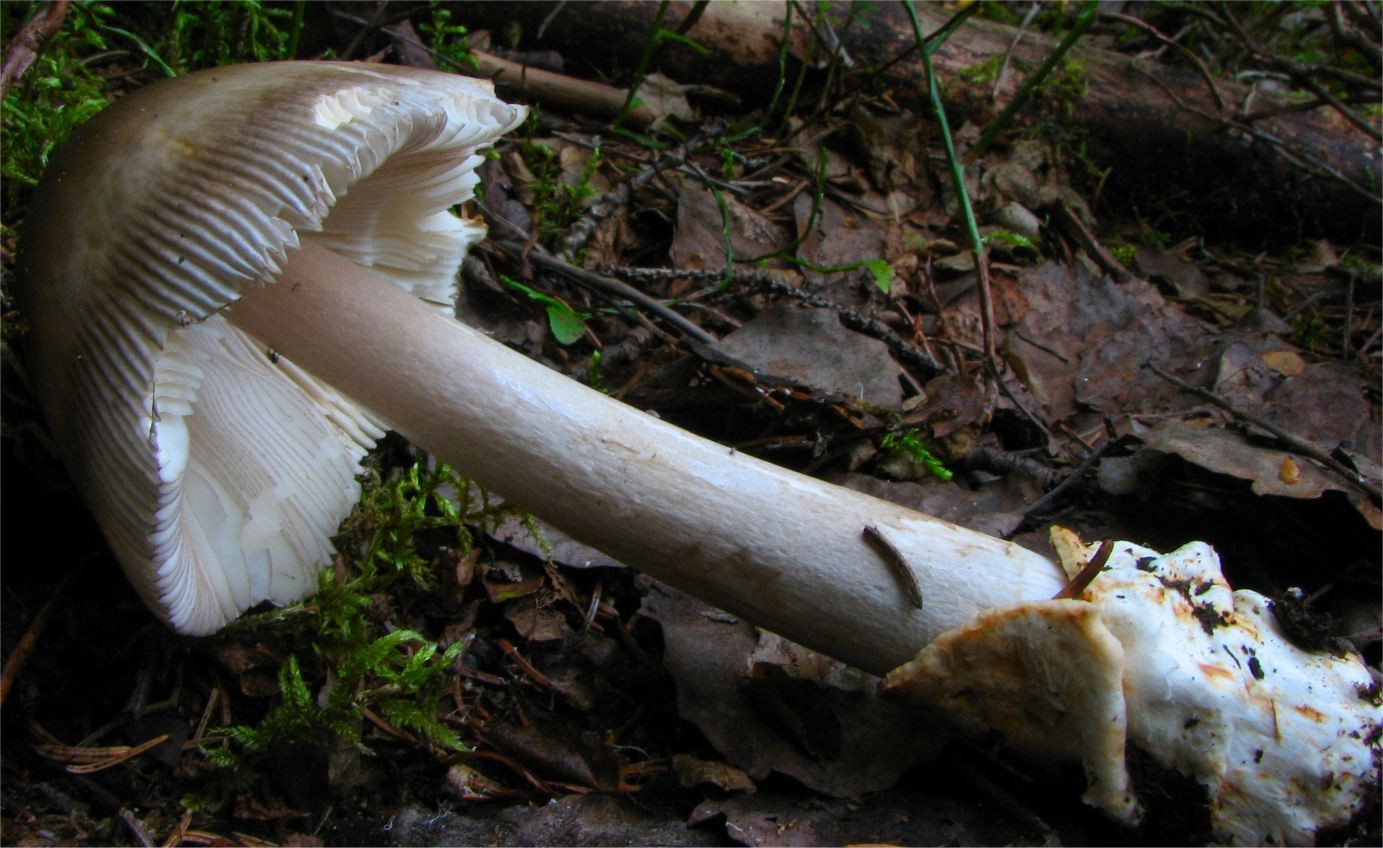
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Zdroj fotografie · CC BY-SA 3.0Amanita battarrae
Najdôležitejšie rozdiely
Muchotrávka hnedoolivová (Amanita submembranacea) tvorí klobúky častejšie pokryté veľkými útržkami plachtičky a jej pošva na báze hlúbika z vnútornej strany zreteľne sivie.
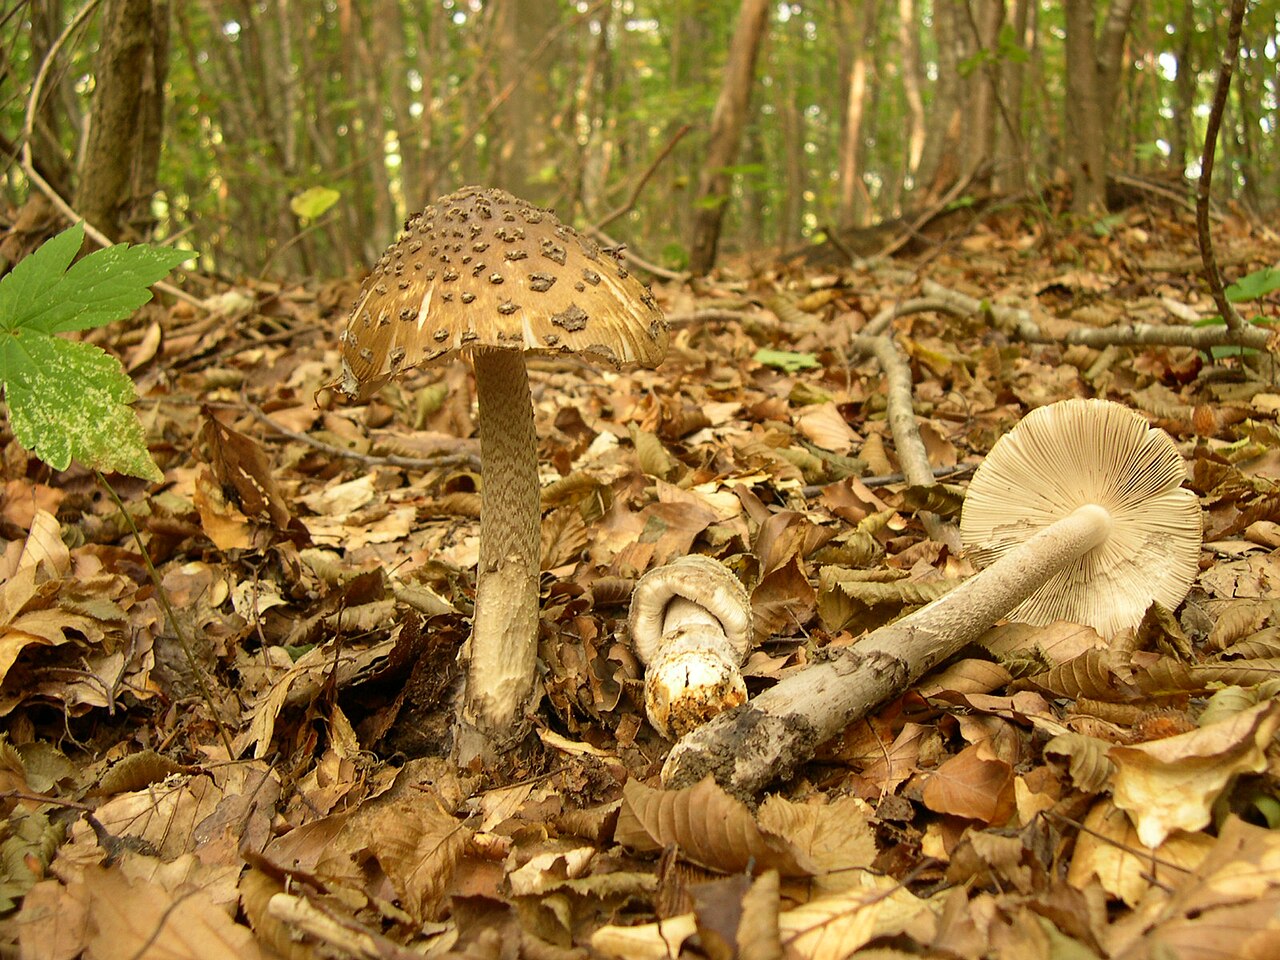
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Zdroj fotografie · CC BY-SA 3.0Amanita ceciliae
Najdôležitejšie rozdiely
Muchotrávka hnedoolivová (Amanita submembranacea) sa líši prítomnosťou veľkých útržkov plachtičky na klobúku a zvnútra sivejúcou pošvou, pričom rastie najmä v horských lesoch na kyslých pôdach.
FAQ
Kde sa táto huba vyskytuje najčastejšie?
Rastie predovšetkým v ihličnatých a zmiešaných lesoch v horských a podhorských polohách.
Je jedlá aj v surovom stave?
Nie, v surovom stave je jedovatá a spôsobuje tráviace ťažkosti.
Aká tepelná úprava je nevyhnutná pred jedlom?
Vyžaduje dôkladné varenie pri bode varu po dobu aspoň 20 až 25 minút.
S akými drevinami tvorí mykorízne spoločenstvá?
Partnerskými stromami sú najmä smrek obyčajný, jedľa biela, borovica a buk.
Aký pôdny substrát preferuje?
Uprednostňuje vlhké, silne humózne a kyslé lesné pôdy bohaté na mach.
V ktorom období roka najviac plodí?
Jej hlavná sezóna prebieha v horských lesoch od júla do septembra.
Prečo má v názve prívlastok sivohnedá?
Názov vystihuje jej typické sivohnedé až olivovohnedé zafarbenie klobúka.
Používala sa v minulosti na farbenie vlny?
Áno, odvar z plodníc slúžil v horách na farbenie vlnenej priadze do bridlicovosivých tónov.
Má plodnica prsteň na hlúbiku?
Nie, nemá prsteň; jej báza je obalená krehkou a ľahko trhavou pošvou.
Aké praktické využitie mala u horských pastierov?
Sušené klobúky sa pálili ako dymadlo na odpudzovanie dotieravého hmyzu pri pasení.
Nadšenec
Názvy a história
- Obowiązująca nazwa krajowa
- muchomor brązowooliwkowy
- Obowiązująca nazwa taksonomiczna
- Amanita submembranacea (Bon) Gröger
- Pozostałe nazwy
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách nadvihnite klobúk a prezrite si sediment.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: biely.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: guľovitý. Tvar výtrusu: takmer guľovitý. Tvar výtrusu: guľovitý. Tvar výtrusu: guľovitý. Tvar výtrusu: izodiametrický (takmer, zriedka).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 9,5–13 µm, šírka 9–12 µm.
- Rozmery
- Zriedkavo sa vyskytujúca forma výtrusu (takmer rovnorozmerný tvar) môže mať dĺžku od 10 do 15 mikrometrov a šírku od 9 do 13 mikrometrov.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Pokus s fenolom
- Materiál
- Dužina plodnice
- Činidlo
- fenol
- Postup
- V opísanom pokuse bol na uvedený materiál použitý fenol.
- Podmienky a chýbajúce zdrojové údaje
V zdroji nie je uvedené: príprava vzorky, koncentrácia fenolu, množstvo činidla, teplota, čas odčítania, podrobný spôsob nanesenia činidla.
Pozorovanie / výsledok
- Zdrojový výsledok
- V dužine sa po použití fenolu dosiahlo špinavo červenohnedé sfarbenie.
- Zdrojový výsledok
- V dužine sa po použití fenolu dosiahlo vínovoružové sfarbenie.
Ekológia a rozšírenie
- Pôdna reakcia
- Pôdna reakcia: kyslý.
- Úrodnosť pôdy
- Úrodnosť pôdy: úrodná.
- Listnaté stromy v okolí
- Listnaté stromy v okolí: dub.
Listnaté stromy v okolí: buk.
Listnaté stromy v okolí: breza.
Listnaté stromy v okolí: jelša.
Listnaté stromy v okolí: lipa.
Listnaté stromy v okolí: hrab. - Ihličnaté stromy v okolí
- Ihličnaté stromy v okolí: smrek.
Ihličnaté stromy v okolí: jedľa. - Kry v okolí
- Kry v okolí: Pinus mugo.
- Mykorízni partneri
- Všeobecná väzba druhu: Mykorízni partneri: Abies (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Betula (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Larix (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Picea (všeobecný zoznam partnerov). - Spôsob výživy
- Spôsob výživy: ektomykorízny.
Nekulinárske využitie
V oblasti nekulinárskych aplikácií sa táto huba historicky uplatnila v horských remeselných tradíciách pri farbení prírodných tkanín. Výluhy z jej tmavosivých a olivovohnedých plodníc v kombinácii so železitou horskou vodou slúžili na farbenie hrubých vlnených priadzí a plstí, ktorým dodávali tmavé, tlmené zemité a bridlicovosivé odtiene. Tieto farby boli vysoko cenené pri výrobe teplého pastierskeho oblečenia a prikrývok odolných voči viditeľnému zašpineniu. V rurálnych horských spoločenstvách Karpát sa staré vysušené klobúky občas využívali ako zložka prírodného dymového odpudzovača lietajúceho hmyzu a ovadov pri pasení oviec v lesnom poraste. V modernom období má význam predovšetkým ako vzdelávací exponát na špecializovaných výstavách a v univerzitných mykologických zbierkach, kde demonštruje adaptáciu lesných organizmov na horské podmienky. Používa sa tiež ako bioindikačný prvok pri vizuálnom hodnotení zachovalosti pôvodných starých horských smrekových a jedľových porastov v národných parkoch.
História a kultúra
Vedecká pozornosť sa na tento druh upriamila v druhej polovici dvadsiateho storočia, keď ho v roku 1975 opísal Marcel Bon ako Amanitopsis submembranacea a v roku 1979 ho Frieder Gröger preradil do rodu Amanita. V horskom folklóre alpských a karpatských usadlostí bola táto huba dlhé generácie vnímaná ako typický symbol drsného vysokohorského lesa. Pôvodní obyvatelia horských dolín ju spájali s príchodom hmiel a chladných jesenných vetrov, pričom v niektorých dedinských poverách sa verilo, že jej náhly výskyt v machu na okraji pastvín predpovedá skorý príchod mrazov a snehu do dolín. Tmavé, olivovosivé tóny jej klobúka viedli v minulosti v ľudovom jazyku k prirovnaniam k olovu, popolu či starému lesnému kameňu. V literárnych prameňoch zameraných na horskú prírodu sa často uvádza ako ilustratívny príklad húb prispôsobených extrémnym stanovištiam. V mykologickej histórii sa stala dôležitým míľnikom pre štúdium variability a diferenciácie horských druhov muchotrávok, čím obohatila európske odborné herbáre a vedecké pojednania o boreálnej mykoflóre.
Jedlosť a bezpečnosť
Muchotrávka pošvatá sivohnedá je jedlá huba, no v surovom stave je toxická a po požití vyvoláva akútne zažívacie ťažkosti a nevoľnosť. Obsiahnuté škodlivé látky sú však citlivé na teplo a dôkladným prevarením sa úplne rozkladajú. Bezpečná konzumácia si preto vyžaduje dlhšiu a spoľahlivú tepelnú úpravu, pri ktorej teplota dosahuje bod varu aspoň dvadsať až dvadsaťpäť minút. Jej dužina je po úprave chuťovo nevýrazná až mierne sladkastá, s príjemnou lesnou vôňou, avšak kvôli svojej krehkej a vodnatej štruktúre rýchlo mäkne. V stredoeurópskych krajinách je jej zber a konzumácia skôr raritou a väčšina hubárov ju prehliada. Naopak, v určitých horských komunitách vo Francúzsku, severnom Taliansku a Švajčiarsku existuje tradícia jej sezónneho využitia v lokálnej vidieckej gastronómii. Pre bezpečnosť je zásadné vyberať len celkom mladé a nenarušené plodnice, pretože staršie kusy v chladnom a vlhkom horskom prostredí rýchlo absorbujú nadmernú vlhkosť a podliehajú bakteriálnemu znehodnoteniu, čo môže spôsobiť sekundárnu otravu.
Biotop a výskyt
Tento druh je typickým zástupcom montánnych a subalpínskych lesných spoločenstiev v strednej, severnej a južnej Európe, pričom známy je aj z horských oblastí Ázie. Na Slovensku a v priľahlých stredoeurópskych pohoriach sa vyskytuje predovšetkým v stredných a vyšších polohách Karpát a Sudetov, v nížinách je veľmi vzácny alebo úplne chýba. Rastie prevažne v ihličnatých a zmiešaných horských lesoch, kde nadväzuje mykorízne vzťahy najmä so smrekom obyčajným, jedľou bielou a borovicou lesnou, v zmiešaných porastoch tiež s bukom lesným. Dáva prednosť kyslým, silne humóznym a trvalo vlhkým pôdam, rašeliniskovým okrajom, machnatým brehom horských potokov a tienistým svahom. Rastová sezóna je silne naviazaná na horské klimatické podmienky a je časovo kratšia než u nížinných druhov. Začína sa zvyčajne v júli a vrcholí v auguste a septembri. V južnejších pohoriach Európy, napríklad v Pyrenejach či Apeninách, sa môže objavovať aj v októbri, zatiaľ čo v severnejších škandinávskych biotopoch končí vegetačné obdobie už s príchodom prvých septembrových nočných mrazov.
Zdroje
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Bádateľ
Jedlosť a kuchyňa
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Vyžadovaná úprava
- Vyžaduje úpravu
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: zdrojová podmienka cuisson; absencia špecifického validovaného protokolu času a teploty
- Jedlosť
- Jedlý — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; didaktická karta, nie bezpečnostná skúška
- Konzumácia za surova
- Jedovatý
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: autor zdroja spája absenciu tepelnej úpravy so škodlivými hemolytickými účinkami. Nestanovuje testovaný bezpečný protokol prípravy.
Vedecké názvy a taxonómia
- Platný vedecký názov
Amanita submembranacea (Bon) Gröger
Vedecké názvy a taxonómia
Amanita submembranacea (Bon) Gröger patrí do čeľade muchotrávkovitých (Amanitaceae) a sekcie Vaginatae. Súčasná kombinácia bola publikovaná v roku 1979 na základe bazionymu Amanitopsis submembranacea Bon z roku 1975.
Vedecké názvy a taxonómia
V historickej mykologickej literatúre býva s týmto taxónom spájaný nepublikovaný názov Amanita subalpina M. M. Moser ined.
Rozsah taxónu a obmedzenia určovania
Súčasná revízia európskej sekcie Vaginatae potvrdzuje druhovú samostatnosť A. submembranacea na základe porovnania mikroskopických znakov pošvy s analýzou sekvencií nrDNA ITS, nrDNA LSU, RPB1 a TEF1-α.
Ekológia a rozšírenie
- Frekvencia výskytu
- Poľsko: Frekvencia výskytu: vzácny. [28]
Laboratórna diagnostika
Dane ustrukturyzowane
Bazídiá
- Tvar bazídia
- Tvar bazídia: kyjakovitý. [25]
Ostatné laboratórne znaky
- Vrchol buniek ostria lupienka
- Vrchol buniek ostria lupienka: hlavičkovitý. [25]
- Zaškrtenia buniek ostria lupienka
- Zaškrtenia buniek ostria lupienka: zaškrtené. [25]
- Priebeh buniek ostria lupienka
- Priebeh buniek ostria lupienka: kľukatý. [25]
- Dĺžka bunky ostria lupienka
- Dĺžka bunky ostria lupienka: 20–40 µm. [37]
Dĺžka bunky ostria lupienka: 20–30 µm. [25] - Článkovanie buniek ostria lupienka
- Článkovanie buniek ostria lupienka: článkované. [25]
- Tvar iných buniek ostria lupene
- Tvar iných buniek ostria lupene: kyjakovitý (široký). [37]
Tvar iných buniek ostria lupene: guľovitý so stopkou (v časti buniek). [25]
Tvar iných buniek ostria lupene: v tvare článku opuncie. [25]
Tvar iných buniek ostria lupene: kladivkovitý. [25] - Pravidelnosť skupiny buniek ostria lupienka
- Pravidelnosť skupiny buniek ostria lupienka: nepravidelný (často). [25]
- Šírka bunky ostria lupienka
- Šírka bunky ostria lupienka: 16–30 µm. [37]
Šírka bunky ostria lupienka: 10–15 µm. [25] - Želatinizácia subhyménia
- Želatinizácia subhyménia: gelatinizovaná (mierne želatinizované, niekedy, na ostrí lupeňa). [25]
- Stavba subhyménia
- Stavba subhyménia: kľukaté. [25]
Stavba subhyménia: článkované (v bazídiofórovej zóne). [25]
Stavba subhyménia: subcelulárne (v bazídiofórovej zóne). [25] - Typy buniek v celkovej plachtičke
- Typy buniek v celkovej plachtičke: sférocysty (čiastočne). [25]
Typy buniek v celkovej plachtičke: vláknité hýfy. [25]
Typy buniek v celkovej plachtičke: vláknité hýfy (prevažujúce, vonkajší povrch vela, pri báze hlúbika). [33]
Typy buniek v celkovej plachtičke: sférocysty (pri báze hlúbika, podiel rastie, smerom dovnútra). [33] - Priemer guľovitých buniek celkovej plachtičky
- Priemer guľovitých buniek celkovej plachtičky: 20–70 µm (sférocysta). [25]
- Tvar bunky celkovej plachtičky
- Tvar bunky celkovej plachtičky: guľovitý. [25]
- Šírka hyfy celkovej plachtičky
- Šírka hyfy celkovej plachtičky: 3–15 µm. [25]
Pokožka klobúka
- Usporiadanie hýf pokožky klobúka
- Usporiadanie hýf pokožky klobúka: Rovnobežné. [31]
Usporiadanie hýf pokožky klobúka: Rovnobežné (hypokutis, viac či menej). [25] - Tvar prvkov pokožky klobúka
- Tvar prvkov pokožky klobúka: valcovitý. [37]
- Šírka prvkov pokožky klobúka
- Šírka prvkov pokožky klobúka: 10–15 µm (hypokutis). [25]
Šírka prvkov pokožky klobúka: 3–6 µm. [31]
Šírka prvkov pokožky klobúka: 3–6 µm (epikutis). [25] - Variabilita želatinizácie pokožky klobúka
- Variabilita želatinizácie pokožky klobúka: premenlivá. [37]
Variabilita želatinizácie pokožky klobúka: premenlivá (epikutis). [25] - Uloženie hyf pokožky v želatinóznej substancii
- Uloženie hyf pokožky v želatinóznej substancii: prítomný (premenlivý stupeň želatinizácie, epikutis). [25]
Výtrusy
- Farba výtrusov pod mikroskopom
- Farba výtrusov pod mikroskopom: hyalínny. [31]
Farba výtrusov pod mikroskopom: žltý (hrdzavá, slabo vyjadrené sfarbenie). [25] - Pôvodné hodnotenie reakcie endospória v jóde
- Pôvodné hodnotenie reakcie endospória v jóde: pseudoamyloidná (slabo, výsledok v zdroji spochybnený). [25]
- Poloha kvapky výtrusu
- Poloha kvapky výtrusu: stredový. [25]
- Kvapky vo vnútri výtrusu
- Kvapky vo vnútri výtrusu: prítomný (veľké kvapky). [25]
Dužina hymenofóru
Materiál a metódy výskumu
Popis znakov — zdroj a rozsah
Materiál: Všeobecný autorský opis Lyon 1: Odeur faible, voire nulle.
Rozsah odpočtu: Zdokumentované pozorovanie.
Obmedzenia: Didaktický opis bez čísla položky; nevnímateľný zápach je iný aspekt než slabá intenzita.
Popis znakov — zdroj a rozsah
Materiál: Skúmaný poľský materiál v opise Ronikier 2012, chuť mild, zápach none.
Rozsah odpočtu: Zdokumentované pozorovanie.
Obmedzenia: Opis autora; nie návod na ochutnávanie surovej huby.
Skúška s chemickým činidlom — materiál a obmedzenia
Materiál: Dužina plodníc v opise Bon 1975, odsek Chair; fenol, bez uvedenej koncentrácie, teploty a času odpočtu.
Rozsah odpočtu: Zdokumentované pozorovanie.
Obmedzenia: Nebola doplnená chronologická zmena sfarbenia ani protokol z iných druhov. Pôvodné určenie sfarbenia a vlastný kvalifikátor zostávajú oddelené.
Štúdia zloženia a aktivity — materiál a obmedzenia
Materiál: Plodnice A. submembranacea, vnútrobunkové striebro; presný súhrnný materiál opísaný v abstrakte.
Rozsah odpočtu: Abstrakt.
Štúdium molekúl — Borovička a kol. (2010)
Materiál: Komplexy striebra a ich peptidový ligand z plodníc A. submembranacea; molekulárne rozdelenie frakcií v abstrakte.
Rozsah prečítania: Abstrakt.
Spoločné obmedzenia čítania zdroja
Obmedzenia: Bol prečítaný celý abstrakt pôvodnej publikácie cez index EuropePMC. Celý článok nebol prečítaný; chýba N a podrobnosti jednotlivých exemplárov. Súhrnný rozsah 304–692 mg/kg pre sekciu Vaginatae nebol priradený tomuto druhu. Nie je to dôkaz zavedenia bioremediácie ani liečebného využitia. Metódy uvedené v abstrakte: chromatografia na základe veľkostného vylúčenia, fluorometria sulfhydrylových skupín, RP-HPLC a vylepšená polyakrylamidová elektroforéza. Neuvedené parametre neboli doplnené. Identifikáciu druhu uviedli autori (2010). Metóda identifikácie a dokladový exemplár nie sú dostupné v prečítanom abstrakte; nebolo vykonané opätovné určenie materiálu.
Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- Výsledky zaznamenané v zdrojoch — Počet výtrusov na bazídii
- Liczba zarodników na jednej podstawce wynosi 4. [25] [37]
- Výsledky zaznamenané v zdrojoch — Priemer výtrusu
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [37]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [25]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [31]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [31]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [31]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [25]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [25]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [25]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [25]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [25]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [25]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [25]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [25]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [25]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [25]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [25]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [25]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [25]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [25]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [25]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [25]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [25]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [25]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [25]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [25]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [25]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [25]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [25]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [37]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [37]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [37]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [37]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [37]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [37]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [37]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [37]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [37]
Kształt zarodnika — zapis źródłowy: „globose” [37]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [37]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [33]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [33]
Názvy a rozsah taxónu
Hlavný názov: Muchomor brązowooliwkowy je názov navrhnutý Wojewodom v poľskom zozname z roku 2003, s. 50; neskoršia poľská terénna správa používa rovnaký názov. Nie je to názov stanovený predpisom. Atlas Ekologia.pl uvádza tiež mglejarka brązowooliwkowa a gryzetka brązowooliwkowa; zachovali sa ako alternatívne názvy s pôvodom z atlasu. Nenašlo sa nezávislé potvrdenie starších označení szaropochwowy a mglejarka szaropochwowa.
Baziónym a synonymika: Bon opísal Amanitopsis submembranacea v roku 1975, s. 176, na základe materiálu z Francúzska; typ Fontanet,17.09.1974,č. 740917. Aktuálna kombinácia v registri je Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum uvádza aj var. griseoargentata Contu 1986 ako synonymum. Ide o stanovisko registra; typ tejto variety sa neskúmal. A. subalpina M. M. Moser ined. zostáva historickým nepublikovaným názvom. Bývalá var. bispora, v súčasnosti A. reidiana, ani porovnávaná A. olivaceogrisea neboli zahrnuté do údajov o druhu.
Molekulárne údaje: Varga a kol. (2024), tabuľka 1, uvádzajú vlastný doklad DB-2018-07-31-1(AD25), Trafoi, Južné Tirolsko, Taliansko, so sekvenciami PP375774,PP375269,PP358527,PP273684. Ostatné riadky zahŕňajú Estónsko, Nemecko, Belgicko, Francúzsko a Rakúsko a odkazujú na staršie práce. Tieto záznamy sa nepovažovali za genetické overenie poľských položiek ani vlastného produktu.
Poľské lokality, biotop a sezóna
Herbárový materiál: Ronikier opísala plodnice z masívu Sarnia Skała: KRAM F-39947 (20.06.2000),F-50021 (04.07.2000),F-54314 (03.07.2002),F-54315 (20.08.2002),F-54316 (16.08.2003), z nadmorskej výšky 910–1160 m, na pôde, v bučine, jedľovo-smrekovom a smrekovom lese. Obr. 9 bol priradený k F-39947. Správa Chachułu a kol. dokumentuje v roku 2018 plodnicu pri kosodrevine,1665 m,11. októbra. Ide o publikované morfologické určenia; neuskutočnilo sa tu ich opätovné určenie ani analýzy DNA.
Atlasová sezóna a pozorovania: Dostupný poľský atlas Ekologia.pl uvádza júl alebo august – október. V riadku sezóny bol zachovaný plný rozsah júl – október s odkazom na atlas; ide o populárne dielo bez vlastnej fenologickej krivky. Skoré júnové zbery z poľskej monografie a registra GRej zostávajú samostatnými pozorovaniami. Neodvodila sa z nich bežná sezóna ani jej vrchol. Francúzsky jún – november a britské termíny neboli dosadené za poľskú sezónu.
Rozšírenie a vzácnosť: Wojewoda zaznamenal Babiu horu,1370–1670 m, podľa Bujakiewicz 1993. Chachuła a kol. (2019) dokumentujú vlastný nález a citujú sedem ďalších oblastí Poľska. Ich označenie rzadko notowany bolo zachované ako hodnotenie z tejto práce, nie súčasné meranie početnosti v celej krajine. V GRej sa rozlíšilo potvrdené číslo exsikátu od deklarácie budúceho odovzdania materiálu. Samotný záznam v GRej nepredstavuje status zákonnej ochrany.
Stavba a metódy mikroskopického výskumu
Poľský materiál a metódy: Opis Ronikier vychádza z materiálov zo skúmanej oblasti uložených v KRAM a ZAMU. Všeobecné metódy zahŕňali stereomikroskop Nikon SMZ 1500 a Nikon Eclipse E600, štandardné svetlo alebo Nomarského kontrast; väčšina meraní sa vykonávala v 5% KOH, niekedy v Melzerovom činidle alebo kongočerveni. Autorka neuvádza médium každého merania tohto druhu ani veľkosť vzoriek. 5% KOH sa nepovažoval za podmienku každej hodnoty. Rozmery štruktúr sa zvyčajne uvádzali ako dĺžka × najväčšia šírka.
Výsledky a porovnateľnosť: Ronikier uvádza výtrusy guľovité a hladké, priemer 10–12 µm, absenciu amyloidnosti, bazídiá 50–57 × 14–15 µm po 4 výtrusy. Bon opisuje bazídiá 55–70 × 15–20 µm po 4 výtrusy a priemer výtrusov (9)–11–13–(14) µm; zriedkavé formy majú 10–15 × 9–13 µm. Kibby uvádza 9,5–13 × 9–12 µm. Priemer nebol prepísaný ako dve osi a zriedkavé formy podľa Bona neboli pridané do bezpodmienečného spoločného merania. Zdrojové rozsahy a krajné hranice zostávajú oddelené.
Bunky ostria a pošva: V poľskom materiáli majú bunky ostria 20–40 × 16–30 µm a sú široko kyjovité. Bon opisuje časť buniek ako guľovito stopkaté 20–30 × 10–15 µm a zvyšné ako deformované, článkované, poprehýbané, zúžené, hlavičkaté alebo kladivkovité. Neboli automaticky stotožnené s cystidami. Plachtička podľa Bona obsahuje slabo spojené guľovité bunky 20–70 µm a spletené hýfy 3–15 µm. U Kibbyho je vonkajšia strana pošvy prevažne vláknitá a smerom do vnútra bunky napučiavajú do sférocýst. Rôzne vrstvy a materiály neboli spojené do jedného bezpodmienečného výsledku.
Pokožka, dužina a pracky: Ronikier definuje pokožku ako (ixo)cutis z valcovitých hýf a uvádza absenciu praciek. Bon opisuje želatinizovanú epicutis s voľnými zakončeniami rovnými alebo kyjovitými, šírky 3–6 µm, a nižšiu vrstvu s iným usporiadaním a pigmentom; hypocutis má hýfy 10–15 µm, medzi užšími 3–7 µm. Trama lupeňov je bilaterálna, s rozlíšením bežných hýf, základných prvkov a zhrubnutí. Všeobecná absencia praciek sa nezamenila za predvolené vyšetrenie každej bázy bunky. Grenoble uvádza výtrusy hyalinné; médium tohto všeobecného hodnotenia zostáva neuvedené, oddelene od popisov fotografií vo vode.
Chemické reakcie: Bon opisuje po fenole špinavo červenohnedé až vínovoružové sfarbenie, pričom ho odlišuje od intenzívnej farby čiernych ríbezlí. Výtrusy označuje ako neamyloidné, hoci v jóde si všíma žltohrdzavú zónu endospóry a kladie otázku o slabej pseudoamyloidnosti. Otáznik sa nepovažoval za pozitívny výsledok ani sa nestotožnil s klasickou amyloidnosťou celého výtrusu. Pre negatívny výsledok poľského materiálu sa neodhadovala koncentrácia činidla, teplota ani čas.
Jedlosť a sila toxikologických dôkazov
Hodnotenia autorov: Grzyby.pl uvádza hodnotenie jedlý a didaktická karta Lyon 1 — jedlý podmienečne. Lyon pripisuje skupine Amanitopsis hemolyzíny, hemolytické príznaky a nutnosť tepelnej úpravy, ale pri tomto tvrdení neuvádza štúdiu špecifického toxínu tohto druhu ani opis konkrétnej série pacientov. Nejde o validovaný bezpečnostný protokol A. submembranacea. Zachovalo sa rozlíšenie medzi hodnotením autora, varovaním pre skupinu a výsledkom výskumu druhu.
Správa ANSES a obmedzenia: ANSES zostavila francúzske hlásenia otráv z roku 2017, pričom vylúčila iba prípady s nulovou súvislosťou s expozíciou. Správa uvádza A. phalloides a A. submembranacea ako taxóny určené z fotografií spomedzi štyroch prípadov ťažkých otráv s amatoxínovým obrazom. Nerozdeľuje počet prípadov medzi oba druhy, neposkytuje individuálnu dokumentáciu, analýzy toxínov plodníc ani údaje vylučujúce zmiešané jedlo. Neumožňuje pripísať tomuto druhu všetkých 25 prípadov, dve úmrtia ani dokázať prítomnosť amatoxínov v jeho správne určených plodniciach. Zmienka nebola vynechaná, ale neprikladala sa jej väčšia príčinná váha, než dokumentuje publikácia.
Stav prehľadu: V preverenom materiáli sa nezistila špecifická analýza hemolyzínov alebo amatoxínov tohto druhu ani úplná individuálna klinická dokumentácia, ktorá by vyriešila vyššie uvedené nezrovnalosti. Ide o obmedzenie prehľadu, nie o dôkaz neprítomnosti toxínov alebo štúdií. Záznam jedlý po úplnej úprave bol označený ako hodnotenie autora didaktickej karty. Nezmenil sa na klinický výsledok ani na kategóriu smrteľne jedovatý.
Akumulácia striebra a iné využitia
Výsledok výskumu druhu: Borovička a kol. (2010) analyzovali komplexy striebra v plodniciach A. submembranacea pomocou rozdeľovacej chromatografie, stanovenia tiolových ligandov a elektroforézy. Celý prečítaný abstrakt uvádza, že takmer všetko skúmané striebro sa nachádzalo vo vnútri buniek, najmä v komplexoch 7 kDa a v menšej frakcii 3,3 kDa; v izolovaných komplexoch sa zistil jediný tiolový peptid s veľkosťou približne 3 kDa. Ide o indíciu účasti metalotioneínu, nie o úplnú identifikáciu mechanizmu v každom exemplári.
Úroveň rešerše a rozsah: Bol prečítaný úplný abstrakt pôvodnej publikácie; nebol získaný plný text s tabuľkami, číslami položiek a metódami. Rozsah 304–692 mg/kg sa v abstrakte týka Amanita spp. sekcie Vaginatae, preto sa jeho hranice nepripísali jedinému druhu. Neprítomnosť glutatiónu a fytochelatínov sa vzťahuje na skúmané izolované komplexy bez tvrdenia o ich biologickej absencii v celom druhu. Výsledky experimentu Osobovej a kol. (2011) na A. strobiliformis sa sem nepreniesli.
Využitie verzus potenciál: Štúdia dokumentuje akumuláciu a viazanie kovu. Nepotvrdzuje zavedenie tohto druhu do čistenia životného prostredia, liečebnej výroby, výživových doplnkov ani získavania striebra. Samostatné hľadanie technických, bylinkárskych, liečebných, farbiarskych a koreninárskych využití neprinieslo v preverenom rozsahu primárny zdroj potvrdzujúci takúto prax. Neznamená to dôkaz o jej neexistencii. Chýbajúce využitie sa nenahradilo využitím iných muchotrávok.
Zdrojová dokumentácia
Zistenia zdroja: Tulloss uvádza pri Amanita submembranacea stromy Abies, Betula, Larix a Picea, vrátane príkladov Picea abies, Abies alba a Larix decidua. Upozorňuje, že časť zbierok z Anglicka, Nórska a Škótska v minulosti označovaných ako A. submembranacea sa ukázala ako A. reidiana. Ide o výhradu k identifikácii týchto zbierok; nepotvrdzuje ich výskyt ako A. submembranacea sensu stricto.
Overenie výskytu — rozsah a obmedzenia
Materiál: Polskie okazy KRAM F-39947,F-50021,F-54314,F-54315,F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Rozsah rešerše: Zdokumentované pozorovanie.
Dátum revízie: 18.10.2026.
Obmedzenia: Bez vlastného opätovného určenia alebo genotypovania. Dátumy zberov nestanovujú hranice sezóny.
Overenie výskytu — rozsah a obmedzenia
Materiál: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Rozsah rešerše: Fragmenty zdrojov.
Bol preštudovaný fragment zdroja; úplný text a metódy neboli overené.
Dátum revízie: 21.10.2026.
Obmedzenia: Pôvodné označenie a rozsah pojmu boli zachované. Nebolo deklarované nové skúmanie položiek ani preštudovanie všetkých publikácií citovaných zdrojom.
Rozsah spracovania
Požadované kontroly sú vysporiadané.
Právny základ a rozsah hodnotenia
Analytické výsledky
Zloženie a laboratórna aktivita
- Výsledok detekcie zložky v materiáli
- Výsledok detekcie zložky v materiáli: zistené (Ag, preparát z plodníc, určený v zdroji, intracelulárne). [7]
- Molekulová hmotnosť ligandu viažuceho kov
- Molekulová hmotnosť ligandu viažuceho kov: 3 kDa (Ag, tiolový peptid, predpokladaná identita, hypotéza: metalotioneín, ligand viažuci striebro, uvedená hodnota). [7]
- Molekulová hmotnosť komplexu kovu
- Molekulová hmotnosť komplexu kovu: 7 kDa (Ag, komplex kovu, intracelulárne, hlavná zložka, hlavná frakcia komplexu striebra, uvedená hodnota). [7]
Molekulová hmotnosť komplexu kovu: 3,3 kDa (Ag, komplex kovu, intracelulárne, vedľajšia zložka, vedľajšia frakcia komplexu striebra, uvedená hodnota). [7]
Najdôležitejšie látky a ich účinok
Najdôležitejšie látky a ich účinok
V plodniciach z lokalít so zvýšeným obsahom kovov sa skúmalo vnútrobunkové viazanie a zadržiavanie striebra; tento prvok sa viaže najmä v peptidových komplexoch s hmotnosťou 7 kDa a 3,3 kDa, s pravdepodobnou účasťou metalotionínov.
Najdôležitejšie látky a ich účinok
V muchotrávkach zo sekcie Vaginatae zo znečistených oblastí sa zaznamenali koncentrácie striebra dosahujúce 304–692 mg/kg.
Najdôležitejšie látky a ich účinok
Konzumácia surových muchotrávok z tejto skupiny vyvoláva hemolytické otravy prejavujúce sa nevoľnosťou, vracaním, rozpadom červených krviniek, krviomočením a rizikom poškodenia obličiek.
Ekologické štúdie
Zdrojová dokumentácia
Zistenia zdroja: NDFF opisuje jediný holandský nález Amanita submembranacea pod hrabom v aleji, na pôde bohatej na živiny. Mimo Holandska uvádza lokality pod ihličnatými a listnatými stromami, najmä na kyslých pôdach. Opis jedného holandského miesta bol zachovaný oddelene od širšej ekológie; výskyt pod hrabom sa nestáva dôkazom mykorízy s týmto stromom ani všeobecnou preferenciou úrodných pôd.
Biotop a výskyt
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Plodenie | Zdroje |
|---|---|---|---|
| Poľsko | Malopoľské vojvodstvo | VII–X |
|
Zdroje
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (także [31])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Borovička i in. 2010 — wyniki abstraktu, odczyt 2026-10-19
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (także [33])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (także [27])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)