
Jedlý

Vyžaduje úpravu

Za syrova jedovatý

Nastavte polohu, abyste viděli údaje pro svůj region.


Muchomůrka poloblanitá (Amanita submembranacea) je méně hojný druh muchomůrky z okruhu pošvatek bez prstenu. Vyznačuje se šedohnědým, olivově hnědým až tmavě hnědým kloboukem s paprsčitě rýhovaným okrajem, který nese šedavé plstnaté zbytky plachty. Třeň je štíhlý, bělavý až našedlý, a vyrůstá z křehké, poloblanité, šedavě zbarvené pochvy. Roste převážně v horských a podhorských jehličnatých lesích.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- Tvar klobouku: zvoncovitý.
u mladých plodnic: Tvar klobouku: vejčitý.
Tvar klobouku: vyklenutý.
Tvar klobouku: plochý. - Reliéf povrchu klobouku
- Reliéf povrchu klobouku: hladký.
- Lesk povrchu klobouku
- Lesk povrchu klobouku: lesklý.
- Lepkavost a slizkost klobouku
- Lepkavost a slizkost klobouku: lepkavý (mírně).
- Barva klobouku
- Barva klobouku: olivově hnědý.
Barva klobouku: žlutohnědý.
Barva klobouku: hnědoolivový. - Reliéf povrchu okraje klobouku
- Reliéf povrchu okraje klobouku: brázditý.
- Průměr klobouku
- Průměr klobouku je 50–100 mm.
- Střed klobouku
- Střed klobouku: s výrazným hrbolem (malý hrbolek, plochý hrbolek).
- Rozsah rýhování okraje klobouku
- Rozsah rýhování okraje klobouku: 0,25–0,5 (v poměru k poloměru klobouku).
- Přítomnost zbytků plachetky na klobouku
- Přítomnost zbytků plachetky na klobouku: nepřítomný.
Přítomnost zbytků plachetky na klobouku: přítomný. - Barva zbytků plachetky na klobouku
- Barva zbytků plachetky na klobouku: šedavý.
- Podoba zbytků plachetky na klobouku
- Podoba zbytků plachetky na klobouku: útržky.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: lupeny.
Lupeny u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: volný od třeně (lupeny).
- Barva hymenoforu
- Barva hymenoforu: bílý.
Barva hymenoforu: krémový. - Makroskopická stavba volného ostří lupenů
- Makroskopická stavba volného ostří lupenů: brvité.
Makroskopická stavba volného ostří lupenů: vločkovité (mírně). - Rozestup lupenů
- Rozestup lupenů: hustě uspořádané.
Rozestup lupenů: ne příliš husté. - Šířková třída lupenů
- Šířková třída lupenů: široké.
Třeň a báze
- Poloha třeně
- Poloha třeně: středový.
- Tvar třeně
- Tvar třeně: válcovitý.
- Báze třeně
- Báze třeně: hlízovitý (mírně).
- Barva třeně
- Barva třeně: bělavá.
v dolní části třeně: Barva třeně: hnědoolivový.
Barva třeně: světle krémový. - Pokryv povrchu třeně
- Pokryv povrchu třeně: šupinatá.
- Vnitřek třeně
- Vnitřek třeně: dutý.
- Konzistence třeně
- Konzistence třeně: křehký.
- Délka třeně
- Délka třeně: 70–150 mm.
- Průměr třeně
- Průměr třeně: 7–15 mm.
- Pochva
- Pochva: přítomný.
Pochva: přítomný.
Pochva: přítomný.
Prsten
- Přítomnost prstenu
- Přítomnost prstenu: bez prstenu.
Plachetka na bázi
- Stavba vela u báze třeně
- Stavba vela u báze třeně: vakovitá.
Stavba vela u báze třeně: vakovitá.
Stavba vela u báze třeně: pruhy (pásy uspořádané do prstenců, ve spodní části třeně).
- Odolnost pochvy a plachetky na bázi proti poškození
- Odolnost pochvy a plachetky na bázi proti poškození: snadno se poškozuje (část vela u báze třeně: pochva).
- Odolnost dužniny třeně proti zlomení nebo roztržení
- Odolnost dužniny třeně proti zlomení nebo roztržení: křehký.
- Zavalitost třeně
- Zavalitost třeně: štíhlý.
- Barva pochvy a plachetky na bázi třeně
- Barva pochvy a plachetky na bázi třeně: šedý (část vela u báze třeně: pochva).
Barva pochvy a plachetky na bázi třeně: šedý (část vela u báze třeně: pochva).
Dužnina
- Barva dužniny
- Barva dužniny: bílý.
- Vůně dužniny
- Vůně dužniny: slabý.
Vůně dužniny: nepřítomný. - Chuťový tón dužniny
- Chuťový tón dužniny: ořechový.
- Charakter chuti dužniny
- Charakter chuti dužniny: mírný.
- Přítomnost vnímatelné chuti dužniny
- Přítomnost vnímatelné chuti dužniny: neznatelný.
Kde a kdy roste
- Stanoviště
- Stanoviště: listnatý les.
Stanoviště: jehličnatý les.
Stanoviště: smíšený les.
Stanoviště: křoviny. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: roztroušené skupiny. - Četnost výskytu
- Četnost výskytu: vzácný.
- Doba růstu
- Plodnice se objevují od července do října.
- Oblast výskytu
- Oblast výskytu: potvrzený.
Jedlost a kuchyně
- Jedlost
- Jedlý
- Nutná úprava
- Vyžaduje úpravu
- Konzumace za syrova
- Za syrova jedovatý
Právo
- Ochrana
- V Polsku nepodléhá druhové ochraně.
- Prodej
- V Polsku není povolen k prodeji ani k výrobě houbových výrobků.
Možná záměna
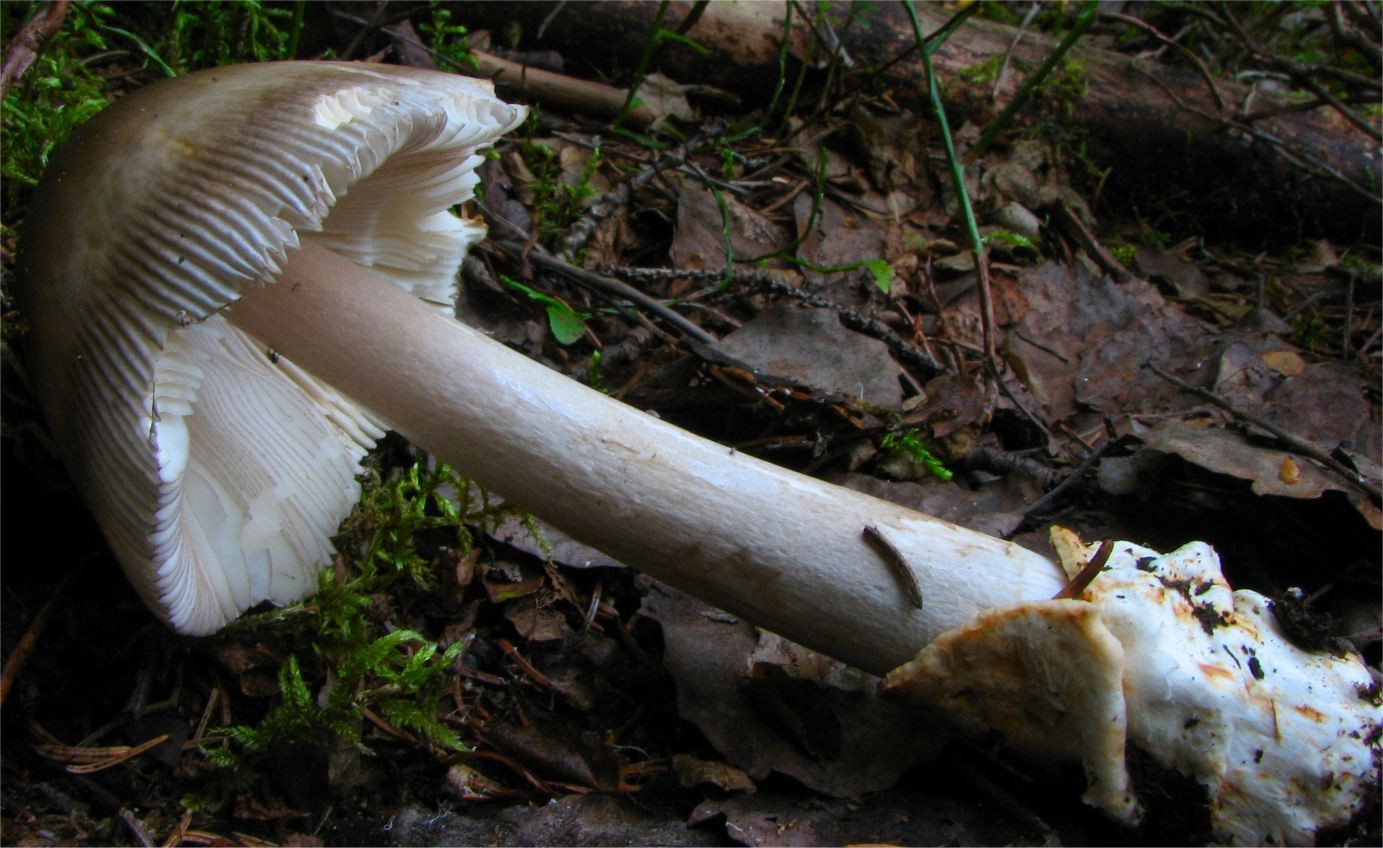
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Zdroj fotografie · CC BY-SA 3.0Amanita battarrae
Hlavní rozdíly
Muchomůrka hnědoolivová (Amanita submembranacea) tvoří klobouky častěji pokryté velkými pláty plachetky a její pochva na bázi třeně z vnitřní strany zřetelně šedne.
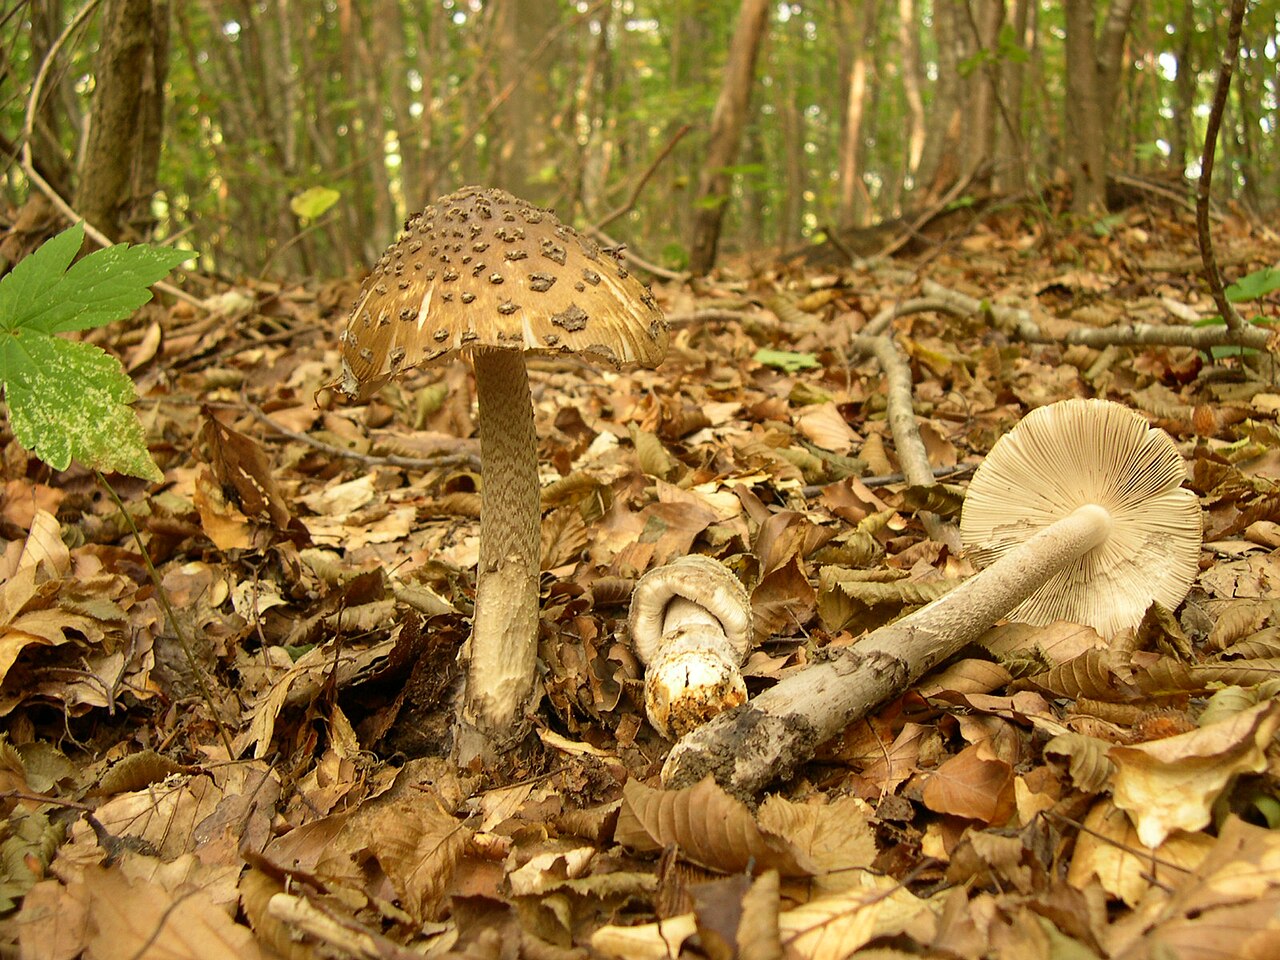
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Zdroj fotografie · CC BY-SA 3.0Amanita ceciliae
Hlavní rozdíly
Muchomůrka hnědoolivová (Amanita submembranacea) se liší přítomností velkých útržků plachetky na klobouku a zevnitř šednoucí pochvou, přičemž roste hlavně v horských lesích na kyselých půdách.
FAQ
Kde muchomůrka poloblanitá roste nejčastěji?
Roste převážně v horských a podhorských jehličnatých a smíšených lesích na kyselém podloží.
Se kterými stromy tvoří mykorhizu?
Hlavními hostitelskými dřevinami jsou smrk ztepilý, jedle bělokorá a borovice lesní.
V jakém ročním období ji lze nalézt?
Vyskytuje se od července do října s nejvyšším výskytem od poloviny srpna do konce září.
Je tento druh jedlý po uvaření?
Ano, po důkladném tepelném zpracování je jedlý, zasyrova však působí zažívací potíže.
Jak dlouhá tepelná úprava je nutná?
Je zapotřebí minimálně dvacet minut důkladného varu či pečení.
Vyskytuje se běžně i v nížinách?
Ne, běžně se v nížinách nevyskytuje, ale nelze ji tam zcela vyloučit. Ačkoli bývá uváděna spíše z vyšších chladnějších poloh, doloženy jsou i nálezy z nížinných lesů.
Jaká je chuť její dužniny?
Chuť uvařené dužniny je mírná, nenápadná a zemitě houbová.
Je v Česku běžně sbírána houbaři?
Běžně se nesbírá, houbaři ji obvykle opomíjejí kvůli vzácnějšímu výskytu a křehkosti.
Používala se někdy k barvení látek?
V horských regionech se občas používala k barvení ovčí vlny do šedoolivových a hnědých tónů.
Kdy byla vědecky popsána?
Byla popsána až ve dvacátém století v rámci detailního výzkumu horské mykoflóry.
Nadšenec
Názvy a historie
- Platné národní jméno
- muchomor brązowooliwkowy
- Platné vědecké jméno
- Amanita submembranacea (Bon) Gröger
- Další jména
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách zvedněte klobouk a prohlédněte si nános.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: bílý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: kulovitý. Tvar výtrusu: téměř kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: izodiametrický (téměř, vzácně).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 9,5–13 µm, šířka 9–12 µm.
- Rozměry
- Vzácně se vyskytující forma výtrusu (téměř rovnorozměrný tvar) může mít délku od 10 do 15 mikrometrů a šířku od 9 do 13 mikrometrů.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Test s fenolem
- Materiál
- Dužnina plodnice
- Činidlo
- fenol
- Provedení
- V popsaném testu byl na uvedený materiál aplikován fenol.
- Podmínky a nedostatky zdrojů
Ve zdroji není uvedeno: příprava vzorku, koncentrace fenolu, množství činidla, teplota, doba odečtu, podrobný způsob nanesení činidla.
Pozorování / výsledek
- Výsledek ze zdroje
- V dužnině byla po použití fenolu získána špinavě červenohnědá barva.
- Výsledek ze zdroje
- V dužnině byla po použití fenolu získána vínově růžová barva.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
- Úrodnost půdy
- Úrodnost půdy: úrodná.
- Listnaté stromy v okolí
- Listnaté stromy v okolí: dub.
Listnaté stromy v okolí: buk.
Listnaté stromy v okolí: bříza.
Listnaté stromy v okolí: olše.
Listnaté stromy v okolí: lípa.
Listnaté stromy v okolí: habr. - Jehličnaté stromy v okolí
- Jehličnaté stromy v okolí: smrk.
Jehličnaté stromy v okolí: jedle. - Keře v okolí
- Keře v okolí: borovice kleč.
- Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: jedle (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: bříza (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: modřín (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: smrky (obecný seznam partnerů). - Způsob výživy
- Způsob výživy: ektomykorhizní.
Mimokulinární využití
Vzhledem ke specifickému výskytu v horských polohách bylo nekulinářské využití tohoto druhu velmi omezené a vázané na lokální zvyklosti horalů. V některých horských oblastech se plodnice příležitostně uplatňovaly v domácím barvířství k tónování surové ovčí vlny na zemité, šedoolivové a hnědé odstíny.
Plodnice byly rovněž využívány při přípravě tradičních přírodních dekorací a aranžmá z mechu a sušených hub v horských chalupách. V moderní praxi má tento druh význam především jako bioindikační prvek zachovalých horských a rašelinných lesů při ochranářském mapování a v mykologickém vzdělávání na univerzitách a v přírodovědných muzeích, kde slouží jako ukázka adaptace bezprstenných muchomůrek na chladná stanoviště.
Historie a kultura
Muchomůrka poloblanitá byla vědecky popsána ve dvacátém století a její historie je úzce spjata s rozvojem moderní evropské horské mykologie. V historické literatuře byla dlouho přehlížena nebo zahrnována do širšího pojetí okruhu muchomůrky pošvaté. Teprve detailní průzkum horských ekosystémů střední Evropy a Skandinávie vedl k jejímu vymezení jako svébytného druhu.
V lidových tradicích obyvatel horských údolí neměla samostatné postavení a byla souhrnně vnímána jako součást divoké lesní flóry nehostinných horských hvozdů. V alpském a karpatském folklóru byly tmavé pošvaté houby vyrůstající v mechu u rašelinišť spojovány s přírodními živly a horskými duchy střežícími hranice lesa. V mykologických publikacích a herbářích reprezentuje typického představitele montánní a boreální zóny chráněných přírodních celků.
Jedlost a bezpečnost
Podobně jako ostatní zástupci bezprstenných muchomůrek je i muchomůrka poloblanitá jedlá výhradně po důkladném povaření, avšak v syrovém stavu je mírně jedovatá a způsobuje zažívací obtíže. Pro bezpečnou konzumaci je vyžadována tepelná úprava trvající minimálně dvacet minut při bodu varu. Nedostatečné tepelné zpracování představuje přímé zdravotní riziko pro trávicí ústrojí.
Chuť uvařené dužniny je jemná, zemitá a mírně houbová. Většina evropských zemí tento druh ke sběru nedoporučuje z důvodu jeho vzácnějšího výskytu a křehkosti dužniny. V horských oblastech Itálie a Francie je příležitostně konzumován místními obyvateli, kteří dobře znají tamní lesní flóru, zatímco v České republice, na Slovensku a v německy mluvících zemích je prakticky opomíjen a ponecháván na stanovišti. Bezpečná konzumace vyžaduje naprostou čerstvost a pečlivou tepelnou přípravu.
Stanoviště a výskyt
Muchomůrka poloblanitá je rozšířena v chladnějších oblastech Evropy, přičemž preferuje horské, podhorské a boreální polohy. Je vázána na jehličnaté a smíšené lesní porosty, kde tvoří ektomykorhizu především se smrkem ztepilým, jedlí bělokorou a borovicemi, vzácněji také s bukem lesním ve vyšších nadmořských výškách. Roste na kyselých, silikátových podkladech, v humózních půdách bohatých na rašeliník a mech, často na vlhkých svazích podél horských potoků.
V nížinách a teplých regionech střední a jižní Evropy se téměř nevyskytuje nebo chybí. Hojnější je v pohořích jako Alpy, Karpaty, Krkonoše či Šumava, a dále v severní Evropě, zejména ve Skandinávii. Fruktifikační období začíná v červenci a trvá do října, přičemž nejvyšší frekvenci růstu vykazuje od poloviny srpna do konce září v závislosti na vlhkosti půdy a průběhu horských letních srážek.
Zdroje
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Nutná úprava
- Vyžaduje úpravu
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: zdrojová podmínka cuisson; chybí specifický validovaný protokol času a teploty
- Jedlost
- Jedlý — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; didaktický list, nikoli bezpečnostní zkouška
- Konzumace za syrova
- Jedovatý
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: autor zdroje spojuje absenci vaření se škodlivými hemolytickými účinky. Nestanovuje testovaný bezpečný protokol přípravy.
Vědecké názvy a taxonomie
- Platné vědecké jméno
Amanita submembranacea (Bon) Gröger
Vědecké názvy a taxonomie
Amanita submembranacea (Bon) Gröger patří do čeledi muchomůrkovitých (Amanitaceae) a sekce Vaginatae. Současná kombinace byla publikována v roce 1979 na základě basonymu Amanitopsis submembranacea Bon z roku 1975.
Vědecké názvy a taxonomie
V historické mykologické literatuře bývá s tímto taxonem spojováno nepublikované jméno Amanita subalpina M. M. Moser ined.
Rozsah taxonu a omezení určování
Moderní revize evropské sekce Vaginatae potvrzuje druhovou samostatnost A. submembranacea na základě kombinace mikroskopických znaků pochvy s analýzou sekvencí nrDNA ITS, nrDNA LSU, RPB1 a TEF1-α.
Ekologie a rozšíření
- Četnost výskytu
- Polsko: Četnost výskytu: vzácný. [28]
Laboratorní diagnostika
Strukturované údaje
Bazidie
- Tvar bazidie
- Tvar bazidie: kyjovitý. [25]
Ostatní laboratorní znaky
- Vrchol buněk ostří lupene
- Vrchol buněk ostří lupene: hlavatý. [25]
- Zaškrcení buněk ostří lupene
- Zaškrcení buněk ostří lupene: zaškrcené. [25]
- Průběh buněk ostří lupene
- Průběh buněk ostří lupene: klikatý. [25]
- Délka buňky ostří lupene
- Délka buňky ostří lupene: 20–40 µm. [37]
Délka buňky ostří lupene: 20–30 µm. [25] - Článkování buněk ostří lupene
- Článkování buněk ostří lupene: článkované. [25]
- Tvar ostatních buněk ostří lupene
- Tvar ostatních buněk ostří lupene: kyjovitý (široký). [37]
Tvar ostatních buněk ostří lupene: kulovitý se stopkou (u části buněk). [25]
Tvar ostatních buněk ostří lupene: ve tvaru článku opuncie. [25]
Tvar ostatních buněk ostří lupene: kladívkovitý. [25] - Pravidelnost skupiny buněk ostří lupene
- Pravidelnost skupiny buněk ostří lupene: nepravidelný (často). [25]
- Šířka buňky ostří lupene
- Šířka buňky ostří lupene: 16–30 µm. [37]
Šířka buňky ostří lupene: 10–15 µm. [25] - Želatinizace subhymenia
- Želatinizace subhymenia: gelatinizovaná (mírně gelatinizované, někdy, na ostří lupenu). [25]
- Stavba subhymenia
- Stavba subhymenia: klikaté. [25]
Stavba subhymenia: článkované (v bazidioforové zóně). [25]
Stavba subhymenia: subcelulární (v bazidioforové zóně). [25] - Typy buněk v celkové plachetce
- Typy buněk v celkové plachetce: sférocysty (částečně). [25]
Typy buněk v celkové plachetce: vláknité hyfy. [25]
Typy buněk v celkové plachetce: vláknité hyfy (převažující, vnější povrch vela, u báze třeně). [33]
Typy buněk v celkové plachetce: sférocysty (u báze třeně, podíl roste, směrem dovnitř). [33] - Průměr kulovitých buněk celkové plachetky
- Průměr kulovitých buněk celkové plachetky: 20–70 µm (sférocysta). [25]
- Tvar buňky celkové plachetky
- Tvar buňky celkové plachetky: kulovitý. [25]
- Šířka hyfy celkové plachetky
- Šířka hyfy celkové plachetky: 3–15 µm. [25]
Pokožka klobouku
- Uspořádání hyf pokožky klobouku
- Uspořádání hyf pokožky klobouku: Rovnoběžné. [31]
Uspořádání hyf pokožky klobouku: Rovnoběžné (hypokutis, více či méně). [25] - Tvar prvků pokožky klobouku
- Tvar prvků pokožky klobouku: válcovitý. [37]
- Šířka prvků pokožky klobouku
- Šířka prvků pokožky klobouku: 10–15 µm (hypokutis). [25]
Šířka prvků pokožky klobouku: 3–6 µm. [31]
Šířka prvků pokožky klobouku: 3–6 µm (epikutis). [25] - Proměnlivost želatinizace pokožky klobouku
- Proměnlivost želatinizace pokožky klobouku: proměnlivá. [37]
Proměnlivost želatinizace pokožky klobouku: proměnlivá (epikutis). [25] - Uložení hyf pokožky v želatinózní substanci
- Uložení hyf pokožky v želatinózní substanci: přítomný (proměnlivý stupeň gelifikace, epikutis). [25]
Výtrusy
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: hyalinní. [31]
Barva výtrusů pod mikroskopem: žlutý (rezavá, slabě vyjádřená barva). [25] - Původní hodnocení reakce endosporia v jódu
- Původní hodnocení reakce endosporia v jódu: pseudoamyloidní (slabě, výsledek ve zdroji zpochybněn). [25]
- Poloha kapky ve výtrusu
- Poloha kapky ve výtrusu: středový. [25]
- Kapky uvnitř výtrusu
- Kapky uvnitř výtrusu: přítomný (velké kapky). [25]
Trama hymenoforu
Materiál a metody výzkumu
Popis znaků — zdroj a rozsah
Materiál: Obecný autorský popis Lyon 1: Odeur faible, voire nulle.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Didaktický popis bez čísla položky; neznatelný zápach je jiný aspekt než slabá intenzita.
Popis znaků — zdroj a rozsah
Materiál: Zkoumaný polský materiál v popisu Ronikier 2012, chuť mild, zápach none.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Popis autora; ne instrukce pro ochutnávání syrové houby.
Test s chemickým činidlem – materiál a omezení
Materiál: Dužnina plodnic v popisu Bon 1975, odstavec Chair; fenol, bez uvedené koncentrace, teploty a doby odečtu.
Rozsah odečtu: Dokumentované pozorování.
Omezení: Nebyla doplněna chronologická změna barvy ani protokol z jiných druhů. Původní označení barvy a vlastní kvalifikátor zůstávají oddělené.
Studie složení a aktivity — materiál a omezení
Materiál: Plodnice A. submembranacea, vnitrobuněčné stříbro; přesný souhrnný materiál popsaný v abstraktu.
Rozsah odečtu: Abstrakt.
Výzkum molekul — Borovička et al. (2010)
Materiál: Komplexy stříbra a jejich peptidový ligand z plodnic A. submembranacea; molekulární separace frakcí v abstraktu.
Rozsah čtení: Abstrakt.
Společná omezení rešerše zdroje
Omezení: Byl přečten celý abstrakt původní publikace prostřednictvím indexu EuropePMC. Celý článek nebyl přečten; chybí N a podrobnosti o jednotlivých položkách. Souhrnný rozsah 304–692 mg/kg pro sekci Vaginatae nebyl tomuto druhu přiřazen. Nejedná se o důkaz zavedení bioremediace ani léčebného využití. Metody uvedené v abstraktu: velikostní vylučovací chromatografie, fluorimetrie sulfhydrylových skupin, RP-HPLC a vylepšená polyakrylamidová elektroforéza. Neuvedené parametry nebyly doplněny. Identifikaci druhu uvedli autoři (2010). Metoda identifikace a dokladový exemplář nejsou v přečteném abstraktu dostupné; opětovné určení materiálu nebylo provedeno.
Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- Výsledky zaznamenané v pramenech — Počet výtrusů na bazidii
- Liczba zarodników na jednej podstawce wynosi 4. [25] [37]
- Výsledky zaznamenané v pramenech — Průměr výtrusu
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [37]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [25]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [31]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [31]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [31]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [25]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [25]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [25]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [25]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [25]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [25]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [25]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [25]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [25]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [25]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [25]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [25]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [25]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [25]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [25]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [25]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [25]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [25]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [25]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [25]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [25]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [25]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [25]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [37]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [37]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [37]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [37]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [37]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [37]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [37]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [37]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [37]
Kształt zarodnika — zapis źródłowy: „globose” [37]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [37]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [33]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [33]
Názvy a rozsah taxonu
Hlavní název: Muchomor brązowooliwkowy je název navržený Wojewodou v polském seznamu z roku 2003, s. 50; pozdější polská terénní zpráva používá tentýž název. Nejedná se o název stanovený předpisem. Atlas Ekologia.pl uvádí také mglejarku brązowooliwkowou a gryzetku brązowooliwkowou; byly zachovány jako alternativní názvy s atlasovým původem. Nebylo nalezeno nezávislé potvrzení dřívějších označení szaropochwowy a mglejarka szaropochwowa.
Basionym a synonymie: Bon popsal Amanitopsis submembranacea v roce 1975, s. 176, na základě materiálu z Francie; typ Fontanet,17.09.1974,č. 740917. Aktuální kombinace v registru je Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum uvádí také var. griseoargentata Contu 1986 jako synonymum. Jde o stanovisko registru; typ této variety nebyl zkoumán. A. subalpina M. M. Moser ined. zůstává historickým nepublikovaným názvem. Někdejší var. bispora, v současnosti A. reidiana, ani porovnávaná A. olivaceogrisea nebyly zahrnuty do údajů o druhu.
Molekulární data: Varga et al. (2024), tabulka 1, uvádějí vlastní položku DB-2018-07-31-1(AD25), Trafoi, Jižní Tyrolsko, Itálie, se sekvencemi PP375774,PP375269,PP358527,PP273684. Zbývající řádky zahrnují Estonsko, Německo, Belgii, Francii a Rakousko a odkazují na dřívější práce. Tyto záznamy nebyly považovány za genetické ověření polských položek ani za vlastní výstup.
Polské lokality, stanoviště a sezóna
Herbářový materiál: Ronikierová popsala plodnice z masivu Sarnia Skała: KRAM F-39947 (20.06.2000),F-50021 (04.07.2000),F-54314 (03.07.2002),F-54315 (20.08.2002),F-54316 (16.08.2003), z nadmořské výšky 910–1160 m, na půdě, v bučině, jedlovo-smrkovém a smrkovém lese. Obr. 9 byl přiřazen k F-39947. Zpráva Chachuły et al. dokumentuje v roce 2018 plodnici u kleče,1665 m,11. října. Jde o publikovaná morfologická určení; nebylo zde provedeno jejich revidované určení ani analýzy DNA.
Atlasová sezóna a pozorování: Dostupný polský atlas Ekologia.pl uvádí červenec nebo srpen–říjen. V řádku sezóny byl zachován plný rozsah červenec–říjen s odkazem na atlas; jde o populární zpracování bez vlastní fenologické křivky. Časné červnové sběry z polské monografie a GRej zůstávají samostatnými pozorováními. Nebyla z nich vyvozena běžná sezóna ani její vrchol. Francouzský červen–listopad ani britské termíny nebyly dosazeny za polskou sezónu.
Rozšíření a vzácnost: Wojewoda zaznamenal Babí horu,1370–1670 m, podle Bujakiewiczové 1993. Chachuła et al. (2019) dokumentují vlastní nález a citují sedm dalších oblastí Polska. Jejich označení vzácně zaznamenávaný bylo zachováno jako hodnocení z této práce, nikoli jako současné měření početnosti v celé zemi. V GRej bylo rozlišeno potvrzené číslo exsikátu od deklarace budoucího předání materiálu. Samotný záznam v GRej nepředstavuje status zákonné ochrany.
Stavba a metody mikroskopických výzkumů
Polský materiál a metody: Popis Ronikierové vychází z materiálů ze zkoumané oblasti uložených v KRAM a ZAMU. Obecné metody zahrnovaly stereomikroskop Nikon SMZ 1500 a Nikon Eclipse E600, standardní světlo nebo Nomarského kontrast; většina měření byla prováděna v 5% KOH, někdy v Melzerově činidle nebo kongové červeni. Autorka neuvádí médium každého měření tohoto druhu ani velikost vzorků. 5% KOH nebylo považováno za podmínku pro každý číselný údaj. Rozměry struktur byly obvykle uváděny jako délka × největší šířka.
Výsledky a srovnatelnost: Ronikierová uvádí výtrusy kulovité a hladké, průměr 10–12 µm, nepřítomnost amyloidnosti, bazidie 50–57 × 14–15 µm se 4 výtrusy. Bon popisuje bazidie 55–70 × 15–20 µm se 4 výtrusy a průměr výtrusů (9)–11–13–(14) µm; vzácné formy mají 10–15 × 9–13 µm. Kibby uvádí 9,5–13 × 9–12 µm. Průměr nebyl přepsán jako dvě osy a vzácné formy podle Bona nebyly přidány do bezpodmínečného společného měření. Zdrojové rozsahy a krajní meze zůstávají oddělené.
Buňky ostří a pochva: V polském materiálu mají buňky ostří 20–40 × 16–30 µm a jsou široce kyjovité. Bon popisuje část buněk jako kulovitě stopkaté 20–30 × 10–15 µm a zbývající jako deformované, článkované, zprohýbané, zaškrcené, hlavičkaté nebo kladívkovité. Nebyly automaticky ztotožněny s cystidami. Plachetka podle Bona obsahuje slabě spojené kulovité buňky 20–70 µm a spletené hyfy 3–15 µm. U Kibbyho je vnější strana pochvy převážně vláknitá a směrem dovnitř buňky zduřují ve sférocysty. Různé vrstvy a materiály nebyly spojeny do jednoho bezpodmínečného výsledku.
Pokožka, trama a přezky: Ronikierová označuje pokožku klobouku jako (ixo)cutis z válcovitých hyf a uvádí absenci přezek. Bon popisuje zrosolovatělou epicutis s volnými zakončeními rovnými nebo kyjovitými, o šířce 3–6 µm, a spodní vrstvu s odlišným uspořádáním a pigmentem; hypocutis má hyfy 10–15 µm, mezi užšími 3–7 µm. Trama lupenů je bilaterální, s rozlišením běžných hyf, základních prvků a ztlustlin. Obecná absence přezek nebyla zaměněna za implicitní vyšetření každé báze buňky. Grenoble uvádí hyalinní výtrusy; médium tohoto obecného hodnocení zůstává neuvedeno, odděleně od popisků fotografií ve vodě.
Chemické reakce: Bon popisuje po fenolu špinavě červenohnědé až vínově růžové zbarvení, přičemž jej odlišuje od intenzivní barvy černého rybízu. Výtrusy označuje jako neamyloidní, ačkoli v jódu zaznamenává žlutorudou zónu endospory a klade otázku ohledně slabé pseudoamyloidity. Otazník nebyl považován za pozitivní výsledek ani nebyl ztotožněn s klasickou amyloidností celého výtrusu. U negativního výsledku polského materiálu nebyla odhadována koncentrace činidla, teplota ani čas.
Jedlost a průkaznost toxikologických důkazů
Hodnocení autorů: Grzyby.pl uvádí hodnocení jedlý a didaktický list Lyon 1 — podmíněně jedlý. Lyon připisuje skupině Amanitopsis hemolyziny, hemolytické příznaky a nutnost tepelné úpravy, ale k této tezi neuvádí studii specifického toxinu tohoto druhu ani popis konkrétní série pacientů. Nejedná se o validovaný bezpečnostní protokol A. submembranacea. Bylo zachováno rozlišení mezi hodnocením autora, varováním pro skupinu a výsledkem výzkumu druhu.
Zpráva ANSES a omezení: ANSES shromáždila francouzská hlášení otrav z roku 2017, přičemž vyloučila pouze případy s nulovou souvislostí s expozicí. Zpráva uvádí A. phalloides a A. submembranacea jako taxony určené z fotografií mezi čtyřmi případy těžkých otrav s amatoxinovým obrazem. Nerozděluje počet případů mezi oba druhy, neposkytuje individuální dokumentaci, analýzy toxinů plodnic ani údaje vylučující konzumaci směsi hub. Nedovoluje přiřadit tomuto druhu všech 25 případů, dvě úmrtí ani prokázat přítomnost amatoxinů v jeho správně určených plodnicích. Zmínka nebyla opomenuta, ale nebyla jí přisouzena větší příčinná váha, než jakou publikace dokumentuje.
Stav přehledu: V prověřeném materiálu nebyla zjištěna specifická analýza hemolyzinů nebo amatoxinů tohoto druhu ani úplná individuální klinická dokumentace, která by výše uvedené nesrovnalosti řešila. Jde o omezení přehledu, nikoli o důkaz nepřítomnosti toxinů nebo studií. Záznam jedlý po důkladné úpravě byl označen jako hodnocení autora didaktického listu. Nebyl zaměněn za klinický výsledek ani za kategorii smrtelně jedovatý.
Akumulace stříbra a další využití
Výsledek výzkumu druhu: Borovička et al. (2010) analyzovali komplexy stříbra v plodnicích A. submembranacea pomocí rozdělovací chromatografie, stanovení thiolových ligandů a elektroforézy. Celý prostudovaný abstrakt uvádí, že téměř veškeré zkoumané stříbro se nacházelo uvnitř buněk, převážně v komplexech 7 kDa a v menší frakci 3,3 kDa; v izolovaných komplexech byl detekován jediný thiolový peptid o velikosti přibližně 3 kDa. To je předpoklad pro účast metalothioneinu, nikoli úplná identifikace mechanismu u každého vzorku.
Úroveň rešerše a rozsah: Byl prostudován úplný abstrakt původní publikace; nebyl získán plný text s tabulkami, čísly položek a metodami. Rozsah 304–692 mg/kg se v abstraktu týká Amanita spp. sekce Vaginatae, jeho hranice proto nebyly přiřazeny jednotlivému druhu. Absence glutathionu a fytochelatinů se vztahuje ke zkoumaným izolovaným komplexům, bez konstatování jejich biologické nepřítomnosti u celého druhu. Výsledky experimentu Osobové et al. (2011) na A. strobiliformis sem nebyly přeneseny.
Využití a potenciál: Výzkum dokumentuje akumulaci a vázání kovu. Nepotvrzuje využití tohoto druhu k čištění životního prostředí, výrobě léčiv, doplňků stravy ani získávání stříbra. Samostatné vyhledávání technických, bylinkářských, léčebných, barvířských a kořeninových využití nepřineslo v prověřeném rozsahu primární zdroj potvrzující takovou praxi. To nepředstavuje důkaz její neexistence. Chybějící využití nebylo nahrazeno využitím jiných muchomůrek.
Zdrojová dokumentace
Zjištění zdroje: Tulloss uvádí u Amanita submembranacea stromy Abies, Betula, Larix a Picea, včetně příkladů Picea abies, Abies alba a Larix decidua. Upozorňuje, že část sběrů z Anglie, Norska a Skotska dříve označovaných jako A. submembranacea se ukázala být A. reidiana. Jde o výhradu k identifikaci těchto sběrů; nepotvrzuje jejich výskyt jako A. submembranacea sensu stricto.
Ověření výskytu — rozsah a omezení
Materiál: Polskie okazy KRAM F-39947,F-50021,F-54314,F-54315,F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Rozsah rešerše: Dokumentované pozorování.
Datum revize: 18.10.2026.
Omezení: Bez vlastního přeurčení nebo genotypování. Data sběrů nestanovují hranice sezóny.
Ověření výskytu — rozsah a omezení
Materiál: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Rozsah rešerše: Fragmenty zdrojů.
Přečten byl fragment zdroje; úplný text a metody nebyly ověřeny.
Datum revize: 21.10.2026.
Omezení: Původní určení a rozsah pojmu byly zachovány. Nebylo deklarováno nové zkoumání položek ani prostudování všech publikací citovaných zdrojem.
Rozsah zpracování
Požadované kontroly jsou vypořádány.
Právní základ a rozsah hodnocení
Analytické výsledky
Složení a laboratorní aktivita
- Výsledek detekce složky v materiálu
- Výsledek detekce složky v materiálu: zjištěno (Ag, preparát z plodnic, určený ve zdroji, intracelulárně). [7]
- Molekulová hmotnost ligandu vážícího kov
- Molekulová hmotnost ligandu vážícího kov: 3 kDa (Ag, thiolový peptid, předpokládaná identita, hypotéza: metalothionein, ligand vázající stříbro, uvedená hodnota). [7]
- Molekulová hmotnost komplexu kovu
- Molekulová hmotnost komplexu kovu: 7 kDa (Ag, komplex kovu, intracelulárně, hlavní složka, hlavní frakce komplexu stříbra, uvedená hodnota). [7]
Molekulová hmotnost komplexu kovu: 3,3 kDa (Ag, komplex kovu, intracelulárně, vedlejší složka, vedlejší frakce komplexu stříbra, uvedená hodnota). [7]
Nejdůležitější látky a jejich účinky
Nejdůležitější látky a jejich účinky
V plodnicích z lokalit se zvýšeným obsahem kovů byla zkoumána vnitrobuněčná vazba a zadržování stříbra; tento prvek je vázán především v peptidových komplexech o hmotnosti 7 kDa a 3,3 kDa, s pravděpodobnou účastí metalothioneinů.
Nejdůležitější látky a jejich účinky
U muchomůrek ze sekce Vaginatae ze znečištěných oblastí byly zaznamenány koncentrace stříbra dosahující 304–692 mg/kg.
Nejdůležitější látky a jejich účinky
Konzumace syrových muchomůrek z této skupiny vyvolává hemolytické otravy projevující se nevolností, zvracením, rozpadem červených krvinek, krví v moči a rizikem poškození ledvin.
Ekologické výzkumy
Zdrojová dokumentace
Zjištění zdroje: NDFF popisuje jediný nizozemský nález Amanita submembranacea pod habrem v aleji na půdě bohaté na živiny. Mimo Nizozemsko uvádí stanoviště pod jehličnatými a listnatými stromy, zejména na kyselých půdách. Popis jednoho nizozemského místa byl zachován odděleně od širší ekologie; výskyt pod habrem se nestává důkazem mykorizy s tímto stromem ani obecnou preferencí úrodných půd.
Stanoviště a výskyt
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Malopolské vojvodství | VII–X |
|
Zdroje
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (také [31])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Borovička i in. 2010 — wyniki abstraktu, odczyt 2026-10-19
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (také [33])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (také [27])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)