
Essbar

Erfordert Zubereitung

Roh giftig

Lege deinen Standort fest, um Daten für deine Region zu sehen.


Der Gefelderte Scheidenstreifling (Amanita submembranacea) ist eine eher seltene Pilzart aus der Sektion Vaginatae. Typisch sind der olivbraune bis graubraune, am Rand stark geriefte Hut, der oft mit dicken, grauen bis bräunlichen Velumflocken besetzt ist, sowie das Fehlen eines Stielrings. Die Stielbasis steckt in einer brüchigen, oft zerreißenden Scheide. Die Art besiedelt vorwiegend montane Nadel- und Mischwälder saurer Standorte und ist im rohen Zustand giftig.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut, Stiel.
Hut
- Hutform
- Hutform: glockenförmig.
bei jungen Fruchtkörpern: Hutform: eiförmig.
Hutform: gewölbt.
Hutform: flach. - Oberflächenrelief des Hutes
- Oberflächenrelief des Hutes: glatt.
- Glanz der Hutoberfläche
- Glanz der Hutoberfläche: glänzend.
- Klebrigkeit und Schleimigkeit des Huts
- Klebrigkeit und Schleimigkeit des Huts: klebrig (leicht).
- Hutfarbe
- Hutfarbe: olivenbraun.
Hutfarbe: gelbbraun.
Hutfarbe: braunoliv. - Oberflächenrelief des Hutrandes
- Oberflächenrelief des Hutrandes: gefurcht.
- Hutdurchmesser
- Der Hutdurchmesser beträgt 50–100 mm.
- Hutmitte
- Hutmitte: mit deutlichem Buckel (kleiner Buckel, flacher Buckel).
- Reichweite der Riefung des Hutrands
- Reichweite der Riefung des Hutrands: 0,25–0,5 (bezogen auf den Hutradius).
- Vorhandensein von Hüllresten auf dem Hut
- Vorhandensein von Hüllresten auf dem Hut: fehlend.
Vorhandensein von Hüllresten auf dem Hut: vorhanden. - Farbe der Hüllreste auf dem Hut
- Farbe der Hüllreste auf dem Hut: graulich.
- Form der Hüllreste auf dem Hut
- Form der Hüllreste auf dem Hut: Flecken.
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Lamellen.
Lamellen am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
- Farbe des Hymenophors
- Farbe des Hymenophors: weiß.
Farbe des Hymenophors: cremefarben. - Makroskopische Struktur der freien Lamellenschneide
- Makroskopische Struktur der freien Lamellenschneide: bewimpert.
Makroskopische Struktur der freien Lamellenschneide: flockig (leicht). - Lamellenabstand
- Lamellenabstand: dicht stehend.
Lamellenabstand: wenig gedrängt. - Breitenklasse der Lamellen
- Breitenklasse der Lamellen: breit.
Stiel und Basis
- Stielposition
- Stielposition: zentral.
- Stielform
- Stielform: zylindrisch.
- Stielbasis
- Stielbasis: knollig (leicht).
- Stielfarbe
- Stielfarbe: weißlich.
im unteren Teil des Stiels: Stielfarbe: braunoliv.
Stielfarbe: hellcremefarben. - Überzug der Stieloberfläche
- Überzug der Stieloberfläche: schuppig.
- Stielinneres
- Stielinneres: hohl.
- Konsistenz des Stiels
- Konsistenz des Stiels: brüchig.
- Stiellänge
- Stiellänge: 70–150 mm.
- Stieldurchmesser
- Stieldurchmesser: 7–15 mm.
- Scheide
- Scheide: vorhanden.
Scheide: vorhanden.
Scheide: vorhanden.
Ring
- Vorhandensein eines Rings
- Vorhandensein eines Rings: ohne Ring.
Hülle an der Basis
- Aufbau des Velums an der Stielbasis
- Aufbau des Velums an der Stielbasis: sackförmig.
Aufbau des Velums an der Stielbasis: sackförmig.
Aufbau des Velums an der Stielbasis: Bänder (ringförmig angeordnete Bänder, am unteren Stielabschnitt).
- Widerstandsfähigkeit von Scheide und Velum an der Basis gegen Beschädigung
- Widerstandsfähigkeit von Scheide und Velum an der Basis gegen Beschädigung: leicht beschädigbar (Hüllstruktur an der Stielbasis: Volva).
- Widerstand des Stielfleisches gegen Brechen oder Reißen
- Widerstand des Stielfleisches gegen Brechen oder Reißen: brüchig.
- Stämmigkeit des Stiels
- Stämmigkeit des Stiels: schlank.
- Farbe der Scheide und des Velums an der Stielbasis
- Farbe der Scheide und des Velums an der Stielbasis: grau (Hüllstruktur an der Stielbasis: Volva).
Farbe der Scheide und des Velums an der Stielbasis: grau (Hüllstruktur an der Stielbasis: Volva).
Fleisch
- Fleischfarbe
- Fleischfarbe: weiß.
- Fleischgeruch
- Fleischgeruch: schwach.
Fleischgeruch: nicht vorhanden. - Geschmacksnote des Fleisches
- Geschmacksnote des Fleisches: nussartig.
- Geschmackscharakter des Fleisches
- Geschmackscharakter des Fleisches: mild.
- Vorhandensein eines wahrnehmbaren Fleischgeschmacks
- Vorhandensein eines wahrnehmbaren Fleischgeschmacks: nicht wahrnehmbar.
Wo und wann er wächst
- Lebensraum
- Lebensraum: Laubwald.
Lebensraum: Nadelwald.
Lebensraum: Mischwald.
Lebensraum: Gebüsch. - Substrat
- Substrat: Boden.
- Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln.
Wuchsweise der Fruchtkörper: verstreute Gruppen. - Vorkommenshäufigkeit
- Vorkommenshäufigkeit: selten.
- Fruchtzeit
- Die Fruchtkörper erscheinen von Juli bis Oktober.
- Verbreitungsgebiet
- Verbreitungsgebiet: bestätigt.
Essbarkeit und Küche
- Speisewert
- Essbar
- Erforderliche Zubereitung
- Erfordert Zubereitung
- Rohverzehr
- Roh giftig
Recht
- Schutzstatus
- Die Art steht in Polen nicht unter Artenschutz.
- Handel
- Die Art ist in Polen weder für den Handel noch für die Herstellung von Pilzerzeugnissen zugelassen.
Verwechslungsmöglichkeiten
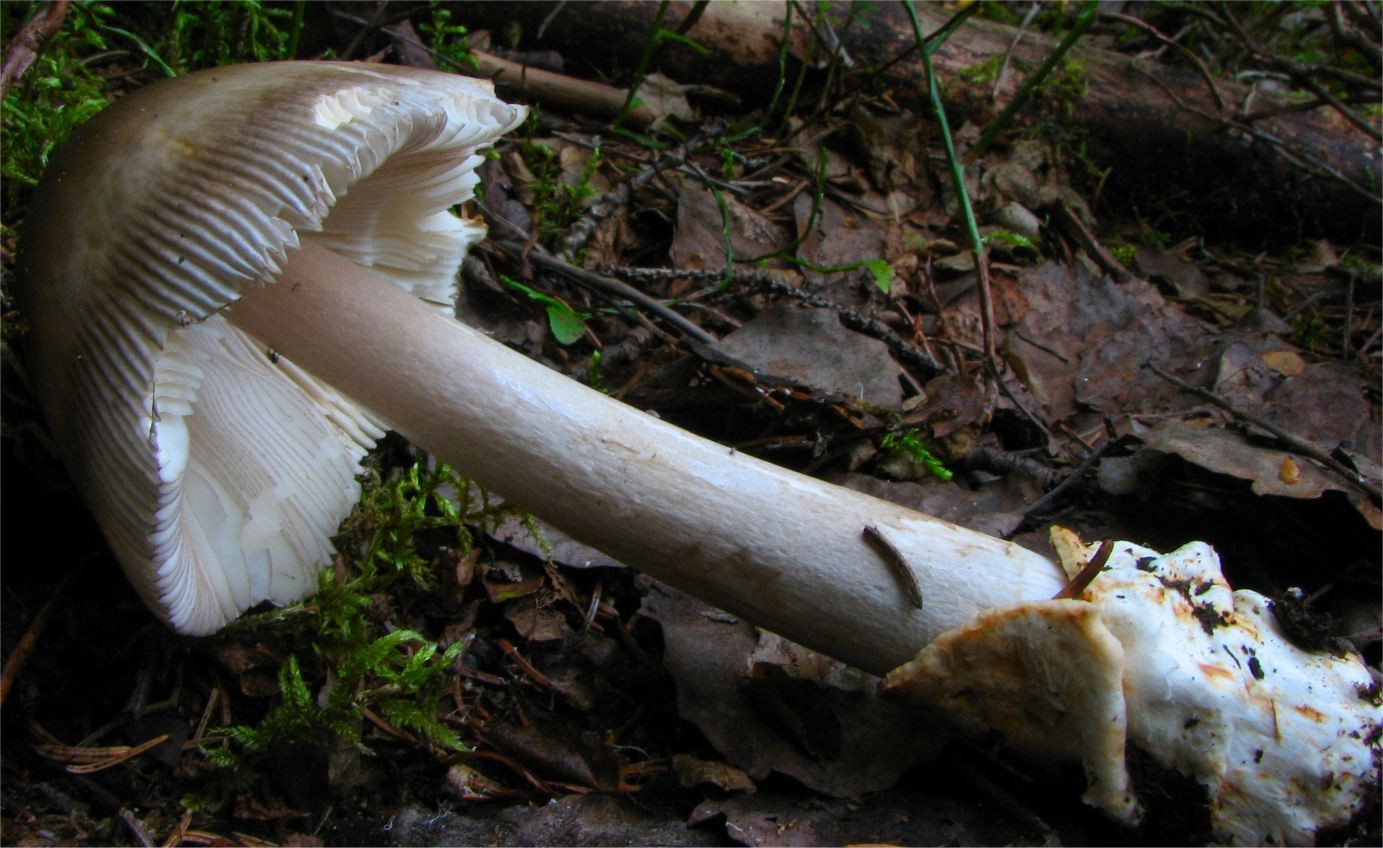
Irene Andersson (irenea) · CC BY-SA 3.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginał zachowano.
Bildquelle · CC BY-SA 3.0Amanita battarrae
Wichtigste Unterschiede
Muchomor brązowooliwkowy (Amanita submembranacea) bildet Hüte, die häufiger mit großen Velumlappen bedeckt sind, und seine Volva an der Stielbasis graut auf der Innenseite deutlich ein.
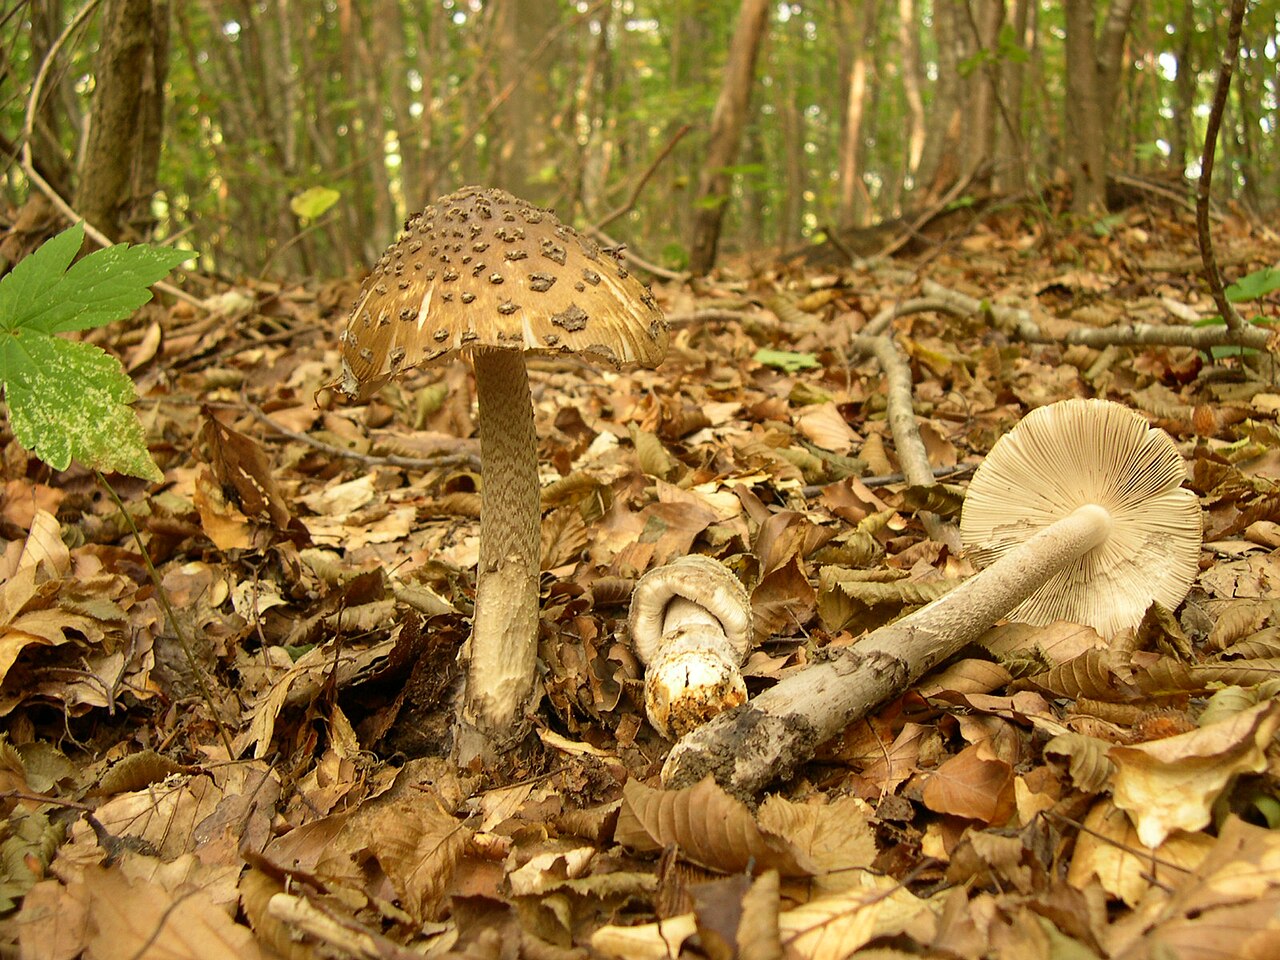
archenzo · CC BY-SA 3.0
Wersja JPEG o szerokości1280px przygotowana przez Wikimedia Commons; bez lokalnej zmiany kadru i koloru.
Bildquelle · CC BY-SA 3.0Amanita ceciliae
Wichtigste Unterschiede
Muchomor brązowooliwkowy (Amanita submembranacea) unterscheidet sich durch das Vorhandensein großer Hüllreste auf dem Hut sowie eine von innen ergrauende Volva und wächst vor allem in Bergwäldern auf sauren Böden.
FAQ
Ist Amanita submembranacea in rohem Zustand giftig?
Ja, rohe Fruchtkörper enthalten thermolabile Giftstoffe, die erst durch vollständiges Garen neutralisiert werden.
Wo ist der Gefelderte Scheidenstreifling hauptsächlich verbreitet?
Er ist eine Gebirgsart, die vor allem in den Alpen, Karpaten, Mittelgebirgen und Skandinavien vorkommt.
Mit welchen Bäumen bildet die Art Mykorrhizen?
Die Art wächst vorwiegend bei Nadelbäumen wie Fichten, Kiefern, Tannen und Lärchen auf saurem Untergrund.
Wie lange sollte der Pilz gegart werden?
Eine Garzeit von mindestens 15 bis 20 Minuten ist erforderlich, um alle hitzeempfindlichen Toxine abzubauen.
Wann liegt die Fruktifikationszeit im Gebirge?
Die Saison reicht typischerweise von Juli bis Anfang Oktober mit dem Höhepunkt im August und September.
Welchen Geschmack hat die Art nach der Zubereitung?
Gegart hat das Fleisch einen dezent milden, unaufdringlichen Geschmack, ist jedoch sehr brüchig.
Kommt die Art auch im norddeutschen Tiefland vor?
Nein, im mitteleuropäischen Tiefland fehlt die Art weitgehend, da sie montane Bedingungen benötigt.
Warum müssen nur junge Exemplare verzehrt werden?
Ältere Fruchtkörper verderben extrem rasch und neigen zur Bildung toxischer Eiweißzersetzungsprodukte.
Wurde der Pilz früher zum Räuchern verwendet?
Ja, getrocknete Pilze wurden auf Almen verglimmt, um Weidevieh vor stechenden Insekten zu schützen.
Gab es eine historische Nutzung zum Färben von Wolle?
Aus den braunen Huthäuten wurden früher graubraune Farbbäder für handgesponnene Schafwolle gewonnen.
Liebhaber
Namen und Geschichte
- Obowiązująca nazwa krajowa
- muchomor brązowooliwkowy
- Obowiązująca nazwa taksonomiczna
- Amanita submembranacea (Bon) Gröger
- Inne nazwy krajowe
- Grauhäutiger Scheidenstreifling
- Pozostałe nazwy
- mglejarka brązowooliwkowa, gryzetka brązowooliwkowa
Beobachtungen zu Hause
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Nach 2–24 Stunden den Hut anheben und den Niederschlag betrachten.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: weiß.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenform
- Sporenform: kugelig. Sporenform: fast kugelig. Sporenform: kugelig. Sporenform: kugelig. Sporenform: isodiametrisch (fast, selten).
- Sporenoberfläche
- Sporenoberfläche: glatt. Sporenoberfläche: glatt.
- Sporenmaße
- Länge 9,5–13 µm, Breite 9–12 µm.
- Maße
- Eine selten auftretende Sporenform (nahezu isodiametrische Form) kann eine Länge von 10 bis 15 Mikrometern und eine Breite von 9 bis 13 Mikrometern aufweisen.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Experiment mit Phenol
- Material
- Fruchtkörperfleisch
- Reagenz
- Phenol
- Durchführung
- Im beschriebenen Versuch wurde Phenol auf das angegebene Material angewendet.
- Bedingungen und fehlende Quellenangaben
In der Quelle nicht angegeben: Probenvorbereitung, Phenolkonzentration, Reagenzmenge, Temperatur, Ablesezeit, genaue Art des Reagenzauftrags.
Beobachtung / Ergebnis
- Quellenergebnis
- Im Fleisch wurde nach Anwendung von Phenol eine schmutzig rotbraune Färbung erhalten.
- Quellenergebnis
- Im Fleisch wurde nach Anwendung von Phenol eine weinrosa Färbung erhalten.
Ökologie und Verbreitung
- Bodenreaktion
- Bodenreaktion: sauer.
- Bodenfruchtbarkeit
- Bodenfruchtbarkeit: fruchtbar.
- Laubbäume in der Umgebung
- Laubbäume in der Umgebung: Eiche.
Laubbäume in der Umgebung: Buche.
Laubbäume in der Umgebung: Birke.
Laubbäume in der Umgebung: Erle.
Laubbäume in der Umgebung: Linde.
Laubbäume in der Umgebung: Hainbuche. - Nadelbäume in der Umgebung
- Nadelbäume in der Umgebung: Fichte.
Nadelbäume in der Umgebung: Tanne. - Sträucher in der Umgebung
- Sträucher in der Umgebung: Pinus mugo.
- Mykorrhizapartner
- Allgemeine Artbeziehung: Mykorrhizapartner: Abies (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Betula (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Larix (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Picea (allgemeine Partnerliste). - Ernährungsweise
- Ernährungsweise: ektomykorrhizal.
Außerkulinarische Verwendungen
Für Amanita submembranacea sind vereinzelte traditionelle Verwendungen im montanen Naturhandwerk und in der alpinen Volkskultur belegt. In früheren Zeiten wurden die dunklen, graubraunen Pigmente der Huthaut in abgelegenen Gebirgsdörfern zur Herstellung erdiger Farbbäder verwendet, um handgesponnene Schafwolle in gedeckten Grau-, Braun- und Olivtönen einzufärben, die für wetterfeste Bergbekleidung geschätzt wurden.
Zudem nutzten Gebirgshirten und Holzknechte in den Karpaten getrocknete Fruchtkörper gelegentlich in Rauchfässern. Beim langsamen Verglimmen entwickelte das trockene Pilzmaterial einen dichten, herben Rauch, der dazu diente, Weidetiere auf Almen vor stechenden Insekten und Bremsen zu schützen. Die elastischen Reste der Basishülle wurden vereinzelt als weiches Stopfmaterial zum Abdichten kleiner Spalten in Almhütten oder Holzschindeldächern eingesetzt.
Im kunsthandwerklichen Bereich fanden eingekochte Pilzsude früher Anwendung als natürliche Tinte für Beschriftungen auf Holz und Zirbenholztafeln. Diese althergebrachten Nutzungsmethoden verloren im Zuge der modernen industriellen Versorgung vollständig an praktischer Relevanz.
Geschichte und Kultur
In der mykologischen Forschungsgeschichte wurde Amanita submembranacea erst im 20. Jahrhundert durch Arbeiten mitteleuropäischer Großpilzforscher wie Marcel Bon und Rolf Singer präzise von verwandten Scheidenstreiflingen abgegrenzt. Aufgrund ihrer Vorliebe für hochmontane Lagen blieb die Art in der antiken und mittelalterlichen Literatur unerwähnt und fand erst mit der systematischen Erforschung der Gebirgsflora ihren festen Platz im Schrifttum.
In den Überlieferungen alpiner Bergbauernkulturen in Tirol, der Schweiz und den Karpaten spiegelte sich die Existenz dieser Gebirgspilze in einfachen Volksbezeichnungen wie 'Gemsenpilz' oder 'Grauer Bergstreifling' wider. Alte Erzählungen schrieben Pilzen, die auf unwirtlichen Hochweiden und in steilen Bergwäldern der Witterung trotzten, eine mythische Verbundenheit mit Naturgeistern und Gebirgsdämonen zu.
In der regionalen Alpenliteratur des 19. und frühen 20. Jahrhunderts wurden die dezent gefärbten Pilze zuweilen als Metapher für die Kargheit und Entbehrung des montanen Lebensraumes herangezogen. Sie galten traditionell als stiller Schmuck der hochgelegenen Fichtenwälder, deren plötzliches Verschwinden vor den ersten Herbstfrösten die bevorstehende Heuernte und den Almabtrieb ankündigte.
Essbarkeit und Sicherheit
Amanita submembranacea wird nach gründlicher thermischer Behandlung als essbar eingestuft, gilt jedoch als wenig ergiebig. Roh ist die Art wie alle Scheidenstreiflinge giftig, da sie hitzeempfindliche Hämolysine enthält, welche zu schweren Vergiftungserscheinungen und Schädigungen des Magen-Darm-Traktes führen können. Eine vollkommene Durchgarung von mindestens fünfzehn bis zwanzig Minuten ist vor jeglichem Verzehr zwingend erforderlich, um diese Giftstoffe verlässlich abzubauen.
Aufgrund des dünnen, rasch verderblichen Fleisches dürfen nur ganz junge, makellose Exemplare verwendet werden. Ältere Fruchtkörper zersetzen sich schnell und können bakterielle Fäulnisgifte bilden. In Bergdörfern der Alpen und Karpaten wurde der Pilz historisch von Einheimischen mitgesammelt, besitzt heute jedoch kaum Marktbedeutung und wird von vielen Pilzkennern wegen seiner Brüchigkeit und Seltenheit geschont. Geschmacklich wird das gegarte Fleisch als mild, aber wenig ausgeprägt beschrieben. Wegen des Risikos giftiger roher Inhaltsstoffe ist ein Verzehr ohne vorheriges langes Erhitzen unter allen Umständen auszuschließen.
Lebensraum und Vorkommen
Amanita submembranacea ist eine boreo-montane Art, deren Hauptverbreitung in den Bergregionen Europas liegt. Nachweise existieren vor allem aus den Alpen, den Karpaten, dem Schwarzwald, den Vogesen, dem Bayerischen Wald sowie den skandinavischen Gebirgen. In den mitteleuropäischen Tieflagen ist die Art ausgesprochen selten oder fehlt völlig. Sie besiedelt feuchte, saure Nadelwälder, Heidelbeer-Fichtenwälder sowie alpine und subalpine Übergangszonen.
Als Mykorrhizapilz ist der Gefelderte Scheidenstreifling eng an Nadelbäume gebunden. Sein häufigster Symbiosepartner ist die Gemeine Fichte (Picea abies), gefolgt von Waldkiefer, Weißtanne und Europäischen Lärche. In subalpinen Lagen kann er zudem an Birken gebunden sein. Er bevorzugt Rohhumusböden über Urgestein wie Granit, Gneis und Silikatgestein, oft inmitten dicker Moospolster oder zwischen Torfmoosen an Moorrandlagen.
Die Fruktifikationsperiode ist an das rauere montane Klima angepasst und erstreckt sich von Juli bis Anfang Oktober. Der Höhepunkt liegt in den meisten Gebirgen im August und September. Bei früh einsetzendem Schneefall oder Nachtfrösten endet das Erscheinen der Fruchtkörper in höheren Lagen bereits gegen Ende September.
Quellen
- AMB-PESARO
- MYCOLOGIE-GRENOBLE
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Marek Snowarski/GRej:Amanita submembranacea
- NationalparkHarz, Großpilzflora, Band23
- src-kibby 2023
- UniversitéClaudeBernardLyon1, Champignons:Amanita submembranacea
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Erforderliche Zubereitung
- Erfordert Zubereitung
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestibilité/Remarque: originale Bedingung cuisson; kein spezifisches validiertes Zeit- und Temperaturprotokoll
- Speisewert
- Essbar — źródło oznaczenia
Materiał: po pełnej obróbce
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Comestible sous condition, Remarque; didaktische Tafel, keine Sicherheitsprüfung
- Rohverzehr
- Giftig
Materiał: surowy
Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna · Remarque; Syndrome associé: Quellautor verknüpft fehlendes Erhitzen mit schädlichen hämolytischen Wirkungen. Begründet kein geprüftes sicheres Zubereitungsprotokoll.
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Amanita submembranacea (Bon) Gröger
Wissenschaftliche Namen und Taxonomie
Amanita submembranacea (Bon) Gröger gehört zur Familie der Wulstlingsverwandten (Amanitaceae) und zur Sektion Vaginatae. Die aktuelle Kombination wurde im Jahr 1979 basierend auf dem Basionym Amanitopsis submembranacea Bon aus dem Jahr 1975 veröffentlicht.
Wissenschaftliche Namen und Taxonomie
In der historischen mykologischen Literatur wird mit diesem Taxon bisweilen der unveröffentlichte Name Amanita subalpina M. M. Moser ined. in Verbindung gebracht.
Taxon-Umfang und Bestimmungsgrenzen
Eine moderne Revision der europäischen Sektion Vaginatae bestätigt den Artstatus von A. submembranacea basierend auf dem Abgleich mikroskopischer Merkmale der Scheide mit der Sequenzanalyse von nrDNA-ITS, nrDNA-LSU, RPB1 und TEF1-α.
Ökologie und Verbreitung
- Vorkommenshäufigkeit
- Polen: Vorkommenshäufigkeit: selten. [28]
Labordiagnostik
Dane ustrukturyzowane
Basidien
- Basidienform
- Basidienform: keulenförmig. [25]
Sonstige Labormerkmale
- Apex der Lamellenschneidenzellen
- Apex der Lamellenschneidenzellen: kopfig. [25]
- Einschnürungen der Lamellenschneidenzellen
- Einschnürungen der Lamellenschneidenzellen: eingeschnürt. [25]
- Verlauf der Lamellenschneidenzellen
- Verlauf der Lamellenschneidenzellen: gewunden. [25]
- Länge der Lamellenschneidenzelle
- Länge der Lamellenschneidenzelle: 20–40 µm. [37]
Länge der Lamellenschneidenzelle: 20–30 µm. [25] - Gliederung der Lamellenschneidenzellen
- Gliederung der Lamellenschneidenzellen: gegliedert. [25]
- Form anderer Lamellenschneidenzellen
- Form anderer Lamellenschneidenzellen: keulenförmig (breit). [37]
Form anderer Lamellenschneidenzellen: kugelig gestielt (in einem Teil der Zellen). [25]
Form anderer Lamellenschneidenzellen: wie ein Opuntiensegment geformt. [25]
Form anderer Lamellenschneidenzellen: hammerförmig. [25] - Regelmäßigkeit der Gruppe der Lamellenschneidenzellen
- Regelmäßigkeit der Gruppe der Lamellenschneidenzellen: unregelmäßig (oft). [25]
- Breite der Lamellenschneidenzelle
- Breite der Lamellenschneidenzelle: 16–30 µm. [37]
Breite der Lamellenschneidenzelle: 10–15 µm. [25] - Gelatinisierung des Subhymeniums
- Gelatinisierung des Subhymeniums: gelatinisiert (leicht gelatinisiert, manchmal, an der Lamellenschneide). [25]
- Aufbau des Subhymeniums
- Aufbau des Subhymeniums: gewunden. [25]
Aufbau des Subhymeniums: gegliedert (in der Basidiophorenzone). [25]
Aufbau des Subhymeniums: subzellulär (in der Basidiophorenzone). [25] - Zelltypen im Velum universale
- Zelltypen im Velum universale: Sphaerozysten (teilweise). [25]
Zelltypen im Velum universale: fadenförmige Hyphen. [25]
Zelltypen im Velum universale: fadenförmige Hyphen (überwiegend, Außenseite des Velums, an der Stielbasis). [33]
Zelltypen im Velum universale: Sphaerozysten (an der Stielbasis, Anteil nimmt zu, nach innen). [33] - Durchmesser der kugelförmigen Zellen des Velum universale
- Durchmesser der kugelförmigen Zellen des Velum universale: 20–70 µm (Sphaerozyste). [25]
- Form der Zelle des Gesamtvelums
- Form der Zelle des Gesamtvelums: kugelig. [25]
- Hyphenbreite des Velum universale
- Hyphenbreite des Velum universale: 3–15 µm. [25]
Huthaut
- Anordnung der Huthauthyphen
- Anordnung der Huthauthyphen: Parallel. [31]
Anordnung der Huthauthyphen: Parallel (Hypocutis, mehr oder weniger). [25] - Form der Elemente der Huthaut
- Form der Elemente der Huthaut: zylindrisch. [37]
- Breite der Elemente der Huthaut
- Breite der Elemente der Huthaut: 10–15 µm (Hypocutis). [25]
Breite der Elemente der Huthaut: 3–6 µm. [31]
Breite der Elemente der Huthaut: 3–6 µm (Epicutis). [25] - Variabilität der Gelatinisierung der Huthaut
- Variabilität der Gelatinisierung der Huthaut: variabel. [37]
Variabilität der Gelatinisierung der Huthaut: variabel (Epicutis). [25] - Einbettung der Huthauthyphen in eine gallertige Substanz
- Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden (unterschiedlicher Gelatinierungsgrad, Epicutis). [25]
Sporen
- Sporenfarbe unter dem Mikroskop
- Sporenfarbe unter dem Mikroskop: hyalin. [31]
Sporenfarbe unter dem Mikroskop: gelb (rostfarben, schwach ausgeprägte Färbung). [25] - Quellenbewertung der Endosporium-Reaktion in Iod
- Quellenbewertung der Endosporium-Reaktion in Iod: pseudoamyloid (schwach, Ergebnis in der Quelle infrage gestellt). [25]
- Lage des Sporentropfens
- Lage des Sporentropfens: zentral. [25]
- Tropfen im Inneren der Spore
- Tropfen im Inneren der Spore: vorhanden (große Tropfen). [25]
Hymenophoraltrama
Untersuchungsmaterial und -methoden
Merkmalsbeschreibung — Quelle und Umfang
Material: Allgemeine Autorenbeschreibung Lyon 1: Odeur faible, voire nulle.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: Didaktische Beschreibung ohne Belegnummer; nicht wahrnehmbarer Geruch ist ein anderer Aspekt als geringe Intensität.
Merkmalsbeschreibung — Quelle und Umfang
Material: Untersuchtes polnisches Material in der Beschreibung Ronikier 2012, Geschmack mild, Geruch none.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: Beschreibung des Autors; keine Anleitung zu Geschmacksproben des rohen Pilzes.
Test mit chemischem Reagenz — Material und Einschränkungen
Material: Fleisch der Fruchtkörper in der Beschreibung Bon 1975, Absatz Chair; Phenol, ohne Angabe von Konzentration, Temperatur und Ablesezeit.
Erfassungsbereich: Dokumentierte Beobachtung.
Einschränkungen: Eine chronologische Farbänderung oder ein Protokoll für andere Arten wurden nicht hinzugefügt. Die originale Farbbezeichnung und der eigene Qualifikator bleiben getrennt.
Untersuchung von Zusammensetzung und Aktivität — Material und Einschränkungen
Material: Fruchtkörper A. submembranacea, intrazelluläres Silber; genaues Sammelmaterial im Abstract beschrieben.
Erfassungsbereich: Abstract.
Untersuchung von Molekülen — Borovička et al. (2010)
Material: Silberkomplexe und ihr Peptidligand aus Fruchtkörpern von A. submembranacea; molekulare Auftrennung der Fraktionen im Abstract.
Umfang der Einsichtnahme: Abstract.
Gemeinsame Einschränkungen der Quellenerfassung
Einschränkungen: Der gesamte Abstract der Originalpublikation wurde über den EuropePMC-Index gelesen. Der Volltextartikel wurde nicht gelesen; keine Angaben zu N und Einzelheiten zu den einzelnen Belegexemplaren. Der Gesamtbereich von 304–692 mg/kg für die Sektion Vaginatae wurde dieser Art nicht zugeordnet. Dies ist kein Nachweis für eine Umsetzung der Bioremediation oder eine medizinische Anwendung. Im Abstract genannte Methoden: Größenausschlusschromatographie, Sulfhydrylgruppen-Fluorometrie, RP-HPLC und verbesserte Polyacrylamid-Elektrophorese. Nicht angegebene Parameter wurden nicht ergänzt. Die Artidentifikation wurde von den Autoren angegeben (2010). Identifikationsmethode und Belegexemplar sind im gelesenen Abstract nicht verfügbar; eine Nachbestimmung des Materials wurde nicht durchgeführt.
Archiwalny opis siedliska
W Wielkiej Brytanii grzyb pojawia się w lasach liściastych i mieszanych, szczególnie pod dębami i bukami, z owocnikowaniem notowanym jesienią (m.in. w październiku).
Archiwalny opis siedliska
W Europie Zachodniej występuje na glebach kwaśnych w lasach liściastych i iglastych, zwłaszcza w rejonach podgórskich i górskich, w okresie od czerwca do listopada.
Archiwalny opis siedliska
W górach Harzu grzyb rośnie w lasach iglastych i mieszanych ze świerkiem na wysokości 280–1000 m n.p.m. (głównie powyżej 600 m), owocnikując od połowy czerwca do listopada.
Archiwalny opis siedliska
W Alpach włoskich owocniki zbierano w sierpniu w lasach z udziałem jodły i buka.
Archiwalny opis siedliska
Materiał potwierdzony badaniami genetycznymi dokumentuje występowanie gatunku w lasach Europy Środkowej i Zachodniej, w tym w Niemczech, Austrii, Belgii, Francji, Włoszech i Estonii.
- In den Quellen dokumentierte Ergebnisse — Sporen je Basidie
- Liczba zarodników na jednej podstawce wynosi 4. [25] [37]
- In den Quellen dokumentierte Ergebnisse — Sporendurchmesser
- Materiał badania: Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed. 10–12 µm [37]
Materiał badania: Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi. 11–13 µm (skrajnie 9–14 µm) [25]
Metody i zapisy źródłowe — Karta Société Mycologique du Dauphiné, opis i mikrofotografie R.G.; brak indywidualnego eksykatu dla opisu. Zdjęcia zarodników opisano jako w wodzie,400× i 1000×; ogólny opis hyalines nie ma osobno określonego medium.
Układ strzępek skórki — zapis źródłowy: „Cuticule ... +/- enchevêtrées ou parallèles; tu tylko alternatywa parallèles, bez przenoszenia +/- z określenia splątania.” [31]
Szerokość elementów skórki — zapis źródłowy: „Cuticule constituée d’hyphes allongées et +/- enchevêtrées ou parallèles, non bouclées, larges de 3 à 6 µm.” [31]
Barwa zarodnika w mikroskopie — zapis źródłowy: „hyalines” [31]
Metody i zapisy źródłowe — Opis pierwotny Bon 1975: typ Fontanet koło LePuy, Francja,17.09.1974,nr 740917; dodatkowe zbiory 740912 i 740920 (s.179). Poszczególnych pomiarów zbiorczego opisu nie przypisano dowolnie jednemu okazowi.
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: iodine. Opis metody w źródle: Bon s.178 podaje jod, bez składu odczynnika, stężenia, czasu i osobnej kalibracji. Nie założono preparatu Melzera.
Układ strzępek skórki — zapis źródłowy: „Bon s.178: cellules sous-jacentes de l’hypocutis ... subparallèles.” [25]
Liczba zarodników na jednej podstawce — zapis źródłowy: „tétraspores” [25]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basides55–70×15–20µm” [25]
Kształt podstawki — zapis źródłowy: „Basides allongées clavé-pédonculées; ogólna część kształtu maczugowatego. Wydłużenie i trzonkowatość zachowano oddzielnie w źródłowej dokumentacji.” [25]
Wierzchołek komórek ostrza blaszki — zapis źródłowy: „Bon s.178: capitées; wierzchołek główkowaty.” [25]
Przewężenia komórek ostrza blaszki — zapis źródłowy: „Bon s.178: étranglées; obecne przewężenia.” [25]
Przebieg komórek ostrza blaszki — zapis źródłowy: „Bon s.178: tortueuses; przebieg kręty.” [25]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Cellules marginales en partie sphéropédonculées (20–30 × 10–15 µm); pomiar tylko tej części komórek.” [25]
Członowanie komórek ostrza blaszki — zapis źródłowy: „Bon s.178: articulées; członowanie niezależne od kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en partie sphéropédonculées; udział dotyczy wyłącznie tego kształtu.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: en raquettes d’Opuntia; odrębny źródłowy kształt, bez przeniesienia częstości nieregularności.” [25]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Bon s.178: et même en marteau; kształt młotkowaty.” [25]
Regularność grupy komórek ostrza blaszki — zapis źródłowy: „Bon s.178: mais souvent difformes; częsta nieregularność grupy komórek, bez przypisania jej arbitralnemu podstawowemu kształtowi.” [25]
Typ tramy hymenoforu — zapis źródłowy: „trame bilatérale” [25]
Szerokość miejscowego rozdęcia strzępki tramy — zapis źródłowy: „Bon s.178: avec parfois des hernies vers15–20µm; czasami miejscowe rozdęcia.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: hyphes de toutes tailles×3–8µm; podstawowy zakres zwykłych strzępek.” [25]
Szerokość strzępek tramy — zapis źródłowy: „Bon s.178: jusque10–15µm pour les hyphes fondamentales.” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: quelques extrémités libres égales ou clavées (×3–6µm).” [25]
Szerokość elementów skórki — zapis źródłowy: „Bon s.178: Hypocutis à hyphes épaissies vers10–15µm; wyłącznie hypocutis.” [25]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Bon s.178: plus ou moins gélifié; zmienność żelu w epicutis.” [25]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Epicutis plus ou moins gélifié en ixocutis; obecność żelu w epicutis. Nie wybrano niepodanego stopnia slight ani strong.” [25]
Organizacja skórki kapelusza — zapis źródłowy: „Bon s.178: Epicutis plus ou moins gélifié en ixocutis; kutis i obecność żelu, stopnia nie podano.” [25]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Bon s.178: zone endosporique un peu jaune-roussâtre dans l’iode; barwa strefy endospory w jodzie.” [25]
Średnica zarodnika — zapis źródłowy: „Bon s.178: diamètre(9)–11–13–(14µm); typowe i skrajne granice osobno.” [25]
Źródłowa ocena reakcji endosporium w jodzie — zapis źródłowy: „Bon s.178: pseudoamyloïdité faible?; pytająca ocena autora, nie potwierdzony dodatni wynik.” [25]
Położenie kropli zarodnika — zapis źródłowy: „À grosse guttule centrale; centralne położenie opisanej kropli, oddzielnie od jej obecności i wielkości.” [25]
Krople wewnątrz zarodnika — zapis źródłowy: „Spores ... à grosse guttule centrale; obecność dużej guttuli, bez oznaczenia jej składu i bez dopisania liczebności z samego liczby pojedynczej słowa.” [25]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Bon s.178:10–15×9–13µm, wyłącznie rzadka forma subizodiametryczna.” [25]
Kształt zarodnika — zapis źródłowy: „Spores globuleuses” [25]
Kształt zarodnika — zapis źródłowy: „Bon s.178: rarement subisodiamétriques (par exemple10–15×9–13µm); rzadka forma niemal równowymiarowa.” [25]
Zżelatynizowanie podhymenium — zapis źródłowy: „Bon s.178: subgélifié parfois au niveau de l’arête; czasami nieznaczny żel przy ostrzu.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: Sous-hyménium tortueux.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: articulé puis subcelluleux dans la zone basidiophore; układ członowany tej strefy, nie chronologia wieku owocnika.” [25]
Budowa subhymenium — zapis źródłowy: „Bon s.178: subcelluleux dans la zone basidiophore; budowa subkomórkowa tej strefy.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: en partie globuleuses; kuliste komórki stanowią część osłony, nie całość.” [25]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Bon s.178: entrelacs d’hyphes filamenteuses; obecność nitkowatych strzępek osłony.” [25]
Średnica kulistych komórek osłony całkowitej — zapis źródłowy: „Bon s.178: hyphes du voile général en partie globuleuses (diamètre20–70µm).” [25]
Kształt komórki osłony całkowitej — zapis źródłowy: „Hyphes du voile général en partie globuleuses; zapis podstawowego kulistego kształtu. Udział i średnica 20–70 µm pozostają oddzielne.” [25]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Entrelacs d’hyphes filamenteuses (× 3–5–10–15 µm); pełne minimum i maksimum szerokości strzępek, nie średnica sferocyst.” [25]
Metody i zapisy źródłowe — Zbadane owocniki masywu Sarniej Skały 2000–2003, Polska; KRAM F-39947,F-50021,F-54314,F-54315,F-54316. Ryc. 9 wiąże struktury z KRAM F-39947. Ogólne metody: Nikon Eclipse E600, światło standardowe lub kontrast Nomarskiego; większość pomiarów w 5%KOH, czasem Melzer/CongoRed.
Liczba zarodników na jednej podstawce — zapis źródłowy: „4-spored” [37]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia50–57×14–15µm” [37]
Długość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar długości, szerokość kształtu pozostaje osobną potrzebą.” [37]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Ronikier s.17: broadly clavate.” [37]
Szerokość komórki ostrza blaszki — zapis źródłowy: „Marginal cells 20–40 × 16–30 µm, broadly clavate; tylko pomiar szerokości.” [37]
Kształt elementów skórki kapelusza — zapis źródłowy: „Pileipellis made up of cylindrical hyphae” [37]
Zmienność zżelatynizowania skórki kapelusza — zapis źródłowy: „Ronikier s.17: (ixo)cutis; źródłowa zmienność oznaczenia żelatynizacji, bez zgadywania stopnia.” [37]
Organizacja skórki kapelusza — zapis źródłowy: „Ronikier s.17: an (ixo)cutis; podstawowa organizacja cutis.” [37]
Średnica zarodnika — zapis źródłowy: „Ronikier s.17: Spores10–12µm, globose; średnica, nie dwie osie.” [37]
Kształt zarodnika — zapis źródłowy: „globose” [37]
Powierzchnia zarodnika — zapis źródłowy: „smooth” [37]
Metody i zapisy źródłowe — src-kibby 2023
Metody i zapisy źródłowe — MYCOLOGIE-GRENOBLE
Metody i zapisy źródłowe — Mikroskopowa budowa pochwy w opisie Kibby (2023), s. 76; nie przypisano jej samowolnie jednej z kolekcji ilustrowanych fotografiami.
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: predominantly filamentous on the outer surface.” [33]
Typy komórek w osłonie całkowitej — zapis źródłowy: „Kibby s.76: becoming progressively more swollen to form large sphaerocysts on the inner tissues; wzrost udziału sferocyst ku wnętrzu.” [33]
Namen und Umfang des Taxons
Hauptname: Muchomor brązowooliwkowy ist ein von Wojewoda in der polnischen Checkliste von 2003, S. 50, vorgeschlagener Name; ein späterer polnischer Feldbericht verwendet denselben Namen. Es handelt sich nicht um einen gesetzlich festgelegten Namen. Der Atlas Ekologia.pl gibt auch mglejarka brązowooliwkowa und gryzetka brązowooliwkowa an; diese wurden als alternative Namen mit Atlas-Herkunft beibehalten. Eine unabhängige Bestätigung der früheren Bezeichnungen szaropochwowy und mglejarka szaropochwowa wurde nicht gefunden.
Basionym und Synonymie: Bon beschrieb Amanitopsis submembranacea im Jahr 1975, S. 176, auf der Grundlage von Material aus Frankreich; Typus Fontanet,17.09.1974,Nr. 740917. Die aktuelle Kombination im Register lautet Amanita submembranacea (Bon) Gröger, Boletus 3 (2): 27 (1979). Species Fungorum führt auch var. griseoargentata Contu 1986 als Synonym an. Dies ist die Auffassung des Registers; der Typus dieser Varietät wurde nicht untersucht. A. subalpina M. M. Moser ined. bleibt ein historischer, unveröffentlichter Name. Weder die frühere var. bispora, derzeit A. reidiana, noch die verglichene A. olivaceogrisea wurden in die Artendaten aufgenommen.
Molekulare Daten: Varga et al. (2024), Tabelle 1, geben einen eigenen Beleg DB-2018-07-31-1(AD25), Trafoi, Südtirol, Italien, mit den Sequenzen PP375774,PP375269,PP358527,PP273684 an. Die übrigen Zeilen umfassen Estland, Deutschland, Belgien, Frankreich und Österreich und verweisen auf frühere Arbeiten. Diese Einträge wurden weder als genetische Verifizierung polnischer Belege noch als eigenes Produkt behandelt.
Polnische Fundorte, Habitat und Saison
Herbarbelege: Ronikier beschrieb Fruchtkörper aus dem Sarnia-Skała-Massiv: KRAM F-39947 (20.06.2000),F-50021 (04.07.2000),F-54314 (03.07.2002),F-54315 (20.08.2002),F-54316 (16.08.2003), aus einer Höhenlage von 910–1160 m, auf Boden, im Buchenwald, Tannen-Fichten- und Fichtenwald. Abb. 9 wurde mit F-39947 verknüpft. Der Bericht von Chachuła et al. dokumentiert im Jahr 2018 einen Fruchtkörper bei Krummholzkiefern,1665 m,11. Oktober. Dies sind publizierte morphologische Bestimmungen; eine Nachbestimmung oder DNA-Untersuchungen wurden hier nicht durchgeführt.
Atlas-Saison und Beobachtungen: Der zugängliche polnische Atlas Ekologia.pl gibt Juli oder August–Oktober an. In der Saisonzeile wurde der volle Bereich Juli–Oktober mit Verweis auf den Atlas beibehalten; es handelt sich um ein populäres Werk ohne eigene phänologische Kurve. Frühe Junifunde aus der polnischen Monografie und GRej bleiben separate Beobachtungen. Daraus wurde weder eine reguläre Saison noch deren Höhepunkt abgeleitet. Das französische Juni–November und britische Zeiträume wurden nicht anstelle der polnischen Saison eingesetzt.
Verbreitung und Seltenheit: Wojewoda verzeichnete Babia Góra,1370–1670 m, nach Bujakiewicz 1993. Chachuła et al. (2019) dokumentieren einen eigenen Fund und zitieren sieben weitere Regionen Polens. Ihre Bezeichnung „rzadko notowany“ (selten verzeichnet) wurde als Einschätzung aus jener Ausarbeitung beibehalten, nicht als moderne Häufigkeitsmessung für das gesamte Land. Im GRej wurde zwischen einer bestätigten Exsikkatnummer und der Absichtserklärung einer künftigen Materialübergabe unterschieden. Der bloße GRej-Eintrag stellt keinen gesetzlichen Schutzstatus dar.
Mikroskopischer Aufbau und Untersuchungsmethoden
Polnisches Material und Methoden: Die Beschreibung von Ronikier stützt sich auf in KRAM und ZAMU aufbewahrtes Material aus dem Untersuchungsgebiet. Die allgemeinen Methoden umfassten ein Stereomikroskop Nikon SMZ 1500 sowie ein Nikon Eclipse E600, Standardlicht oder Nomarski-Kontrast; die meisten Messungen wurden in 5% KOH durchgeführt, gelegentlich in Melzers Reagenz oder Kongorot. Die Autorin nennt weder das Medium jeder Messung dieser Art noch den Stichprobenumfang. 5% KOH wurde nicht als Voraussetzung jedes Messwerts angenommen. Die Abmessungen von Strukturen wurden gewöhnlich als Länge × größte Breite angegeben.
Ergebnisse und Vergleichbarkeit: Ronikier gibt Sporen als kugelig und glatt an, Durchmesser 10–12 µm, keine Amyloidität, Basidien 50–57 × 14–15 µm mit 4 Sporen. Bon beschreibt Basidien mit 55–70 × 15–20 µm und 4 Sporen sowie Sporendurchmesser (9)–11–13–(14) µm; seltene Formen messen 10–15 × 9–13 µm. Kibby gibt 9,5–13 × 9–12 µm an. Der Durchmesser wurde nicht in zwei Achsen umgeschrieben, und seltene Formen von Bon wurden nicht in eine bedingungslose gemeinsame Messung eingefügt. Die originalen Bereiche und Extremwerte bleiben getrennt.
Schneidenzellen und Volva: Im polnischen Material messen die Schneidenzellen 20–40 × 16–30 µm und sind breit keulig. Bon beschreibt einen Teil der Zellen als kugelig-gestielt 20–30 × 10–15 µm und die übrigen als deformiert, gegliedert, gebogen, eingeschnürt, kopfig oder hammerförmig. Sie wurden nicht automatisch mit Zystiden gleichgesetzt. Das Velum bei Bon enthält locker verbundene kugelige Zellen 20–70 µm und verschlungene Hyphen 3–15 µm. Bei Kibby ist die Außenseite der Volva überwiegend fädig, und nach innen hin schwellen die Zellen zu Sphärozysten an. Unterschiedliche Schichten und Materialien wurden nicht zu einem bedingungslosen Gesamtergebnis zusammengefasst.
Huthaut, Trama und Schnallen: Ronikier bestimmt die Huthaut als (Ixo)cutis aus zylindrischen Hyphen und gibt das Fehlen von Schnallen an. Bon beschreibt eine gelatinisierte Epicutis mit geraden oder keuligen freien Enden von 3–6 µm Breite sowie eine tiefere Schicht mit anderer Anordnung und anderem Pigment; die Hypocutis besitzt Hyphen von 10–15 µm zwischen schmaleren 3–7 µm. Das Lamellentrama ist bilateral, mit Differenzierung zwischen gewöhnlichen Hyphen, Basiselementen und Verdickungen. Das allgemeine Fehlen von Schnallen wurde nicht in eine implizite Untersuchung jeder Zellbasis umgedeutet. Grenoble gibt hyaline Sporen an; das Medium dieser allgemeinen Beurteilung bleibt ungenannt, getrennt von den Bildunterschriften in Wasser.
Chemische Reaktionen: Bon beschreibt mit Phenol eine schmutzig rotbraune bis weinrosa Färbung, im Unterschied zu einer intensiven Cassis-Färbung. Die Sporen bezeichnet er als inamyloid, bemerkt jedoch in Iod eine gelblich-rötliche Endospor-Zone und wirft die Frage einer schwachen Pseudoamyloidität auf. Das Fragezeichen wurde weder als positives Ergebnis gewertet noch mit einer klassischen Amyloidität der gesamten Spore gleichgesetzt. Für das negative Ergebnis des polnischen Materials wurden Reagenzkonzentration, Temperatur und Zeit nicht gemutmaßt.
Essbarkeit und toxikologische Evidenzkraft
Autorenbewertungen: Grzyby.pl gibt die Bewertung essbar an und die didaktische Tafel Lyon 1 — bedingt essbar. Lyon schreibt der Gruppe Amanitopsis Hämolysine, hämolytische Symptome und die Notwendigkeit des Erhitzens zu, liefert zu dieser These jedoch weder eine Untersuchung spezifischer Toxine dieser Art noch die Beschreibung einer konkreten Patientenserie. Dies ist kein validiertes Sicherheitsprotokoll A. submembranacea. Die Unterscheidung zwischen Autorenbewertung, Gruppenwarnung und Untersuchungsergebnis für die Art wurde beibehalten.
ANSES-Bericht und Einschränkungen: ANSES stellte französische Vergiftungsmeldungen aus dem Jahr 2017 zusammen und schloss lediglich Fälle ohne jeglichen Zusammenhang mit der Exposition aus. Der Bericht nennt A. phalloides und A. submembranacea als anhand von Fotos identifizierte Taxa unter vier Fällen schwerer Vergiftungen mit Amatoxin-Symptomatik. Er schlüsselt die Fallzahl nicht zwischen beiden Arten auf, stellt keine Einzelfallakten, Toxinanalysen der Fruchtkörper oder Daten zum Ausschluss von Mischpilzgerichten bereit. Er erlaubt es weder, dieser Art alle 25 Fälle oder zwei Todesfälle zuzuschreiben, noch das Vorhandensein von Amatoxinen in ihren korrekt bestimmten Fruchtkörpern nachzuweisen. Die Erwähnung wurde nicht übergangen, ihr wurde jedoch keine größere Kausalkraft beigemessen, als die Publikation belegt.
Stand der Übersicht: Im geprüften Material fand sich weder eine spezifische Hämolyzin- oder Amatoxinanalyse dieser Art noch eine vollständige individuelle klinische Dokumentation, die die obigen Diskrepanzen aufklären würde. Dies ist eine Einschränkung der Übersicht, kein Beweis für das Fehlen von Toxinen oder Untersuchungen. Der Eintrag essbar nach vollständiger Garung wurde als Einschätzung des Autors der didaktischen Tafel gekennzeichnet. Er wurde weder in ein klinisches Ergebnis noch in die Kategorie tödlich giftig umgewandelt.
Silberakkumulation und sonstige Verwendungen
Untersuchungsergebnis zur Art: Borovička et al. (2010) analysierten Silberkomplexe in Fruchtkörpern von A. submembranacea mittels Verteilungschromatographie, Thiol-Liganden-Bestimmungen und Elektrophorese. Der gesamte eingesehene Abstract gibt an, dass sich nahezu das gesamte untersuchte Silber intrazellulär befand, hauptsächlich in Komplexen von 7 kDa und in einer kleineren Fraktion von 3,3 kDa; in den isolierten Komplexen wurde ein einzelnes Thiol-Peptid von etwa 3 kDa nachgewiesen. Dies ist ein Hinweis auf die Beteiligung von Metallothionein, keine vollständige Identifizierung des Mechanismus in jedem Exemplar.
Erfassungsgrad und Umfang: Es wurde der vollständige Abstract der Primärpublikation eingesehen; der Volltext mit Tabellen, Belegnummern und Methoden lag nicht vor. Der Bereich 304–692 mg/kg bezieht sich im Abstract auf Amanita spp. der Sektion Vaginatae, daher wurden dessen Grenzwerte nicht einer einzelnen Art zugeordnet. Das Fehlen von Glutathion und Phytochelatinen bezieht sich auf die untersuchten isolierten Komplexe, ohne deren biologische Abwesenheit in der gesamten Art festzustellen. Ergebnisse des Experiments von Osobová et al. (2011) an A. strobiliformis wurden nicht hierher übertragen.
Anwendung versus Potenzial: Die Studie dokumentiert Metallakkumulation und -bindung. Sie bestätigt weder den Einsatz dieser Art zur Umweltsanierung noch zur medizinischen Produktion, für Nahrungsergänzungsmittel oder zur Silbergewinnung. Eine gesonderte Suche nach technischen, heilkundlichen, medizinischen, färberischen und Würzverwendungen lieferte im geprüften Umfang keine Primärquelle, die eine solche Praxis belegt. Dies bedeutet keinen Beweis für deren Nichtexistenz. Eine fehlende Anwendung wurde nicht durch Verwendungen anderer Knollenblätterpilze ersetzt.
Quellendokumentation
Quellenfeststellungen: Tulloss führt bei Amanita submembranacea die Bäume Abies, Betula, Larix und Picea an, darunter Beispiele für Picea abies, Abies alba und Larix decidua. Er weist darauf hin, dass sich ein Teil der Aufsammlungen aus England, Norwegen und Schottland, die früher als A. submembranacea bestimmt wurden, als A. reidiana erwies. Dies ist ein Vorbehalt hinsichtlich der Bestimmung dieser Aufsammlungen; er bestätigt nicht deren Vorkommen als A. submembranacea sensu stricto.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Polskie okazy KRAM F-39947,F-50021,F-54314,F-54315,F-54316 z masywu Sarniej Skały; stanowisko Babiogórskiego PN 2018 i polskie rekordy GRej.
Erfassungsumfang: Dokumentierte Beobachtung.
Überprüfungsdatum: 18.10.2026.
Einschränkungen: Ohne eigene Nachbestimmung oder Genotypisierung. Funddaten legen keine Saisongrenzen fest.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Zbiór z województwa małopolskiego oznaczony przez Błażeja Gierczyka.
Leseumfang: Quellenauszüge.
Ein Quellenauszug wurde gelesen; Volltext und Methoden wurden nicht überprüft.
Überprüfungsdatum: 21.10.2026.
Einschränkungen: Die ursprüngliche Bestimmung und der Begriffsumfang wurden beibehalten. Es wurde weder eine Neubegutachtung von Belegen noch das Lesen aller von der Quelle zitierten Publikationen deklariert.
Bearbeitungsumfang
Erforderliche Kontrollen sind abgerechnet.
Rechtsgrundlage und Bewertungsumfang
Analytische Ergebnisse
Zusammensetzung und Laboraktivität
- Ergebnis des Komponentennachweises im Material
- Ergebnis des Komponentennachweises im Material: nachgewiesen (Ag, Fruchtkörperpräparat, in der Quelle bestimmt, intrazellulär). [7]
- Molekülmasse des metallbindenden Liganden
- Molekülmasse des metallbindenden Liganden: 3 kDa (Ag, Thiolpeptid, vermutete Identität, Hypothese: Metallothionein, silberbindender Ligand, berichteter Wert). [7]
- Molekülmasse des Metallkomplexes
- Molekülmasse des Metallkomplexes: 7 kDa (Ag, Metallkomplex, intrazellulär, Hauptkomponente, Hauptfraktion des Silberkomplexes, berichteter Wert). [7]
Molekülmasse des Metallkomplexes: 3,3 kDa (Ag, Metallkomplex, intrazellulär, Nebenkomponente, Nebenfraktion des Silberkomplexes, berichteter Wert). [7]
Wichtigste Inhaltsstoffe und ihre Wirkung
Wichtigste Inhaltsstoffe und ihre Wirkung
In Fruchtkörpern von Standorten mit erhöhtem Metallgehalt wurden die intrazelluläre Bindung und Retention von Silber untersucht; dieses Element wird hauptsächlich in Peptidkomplexen mit einer Masse von 7 kDa sowie 3,3 kDa gebunden, wahrscheinlich unter Beteiligung von Metallothioneinen.
Wichtigste Inhaltsstoffe und ihre Wirkung
In Scheidenstreiflingen aus der Sektion Vaginatae aus kontaminierten Gebieten wurden Silberkonzentrationen von bis zu 304–692 mg/kg nachgewiesen.
Wichtigste Inhaltsstoffe und ihre Wirkung
Der Verzehr roher Scheidenstreiflinge aus dieser Gruppe verursacht hämolytische Vergiftungen, die sich durch Übelkeit, Erbrechen, Zerfall roter Blutkörperchen, Hämaturie und das Risiko von Nierenschäden äußern.
Ökologische Untersuchungen
Quellendokumentation
Quellenfeststellungen: NDFF beschreibt den einzigen niederländischen Fund von Amanita submembranacea unter Hainbuche in einer Allee auf nährstoffreichem Boden. Außerhalb der Niederlande nennt es Standorte unter Nadel- und Laubbäumen, insbesondere auf sauren Böden. Die Beschreibung des einen niederländischen Fundorts wurde getrennt von der weiteren Ökologie beibehalten; das Vorkommen unter Hainbuche wird weder zum Beleg für eine Mykorrhiza mit diesem Baum noch zu einer allgemeinen Bevorzugung nährstoffreicher Böden.
Lebensraum und Vorkommen
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Fruchtbildung | Quellen |
|---|---|---|---|
| Polen | Woiwodschaft Kleinpolen | VII–X |
|
Quellen
- Société Mycologique du Dauphiné, Amanita submembranacea, opis i mikrofotografie R.G. (także [31])
- NDFF Verspreidingsatlas: Amanita submembranacea
- Tulloss, Amanita Studies: Amanita submembranacea
- WOJ-2003
- Borovička i in. 2010 — wyniki abstraktu, odczyt 2026-10-19
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- Marek Snowarski/GRej:Amanita submembranacea
- src-kibby 2023 (także [33])
- NCBITaxonomy619305
- Borovička i in. 2010, Science of the Total Environment408:2733–2744, DOI 10.1016/j.scitotenv.2010.02.031; pełny abstrakt w EuropePMC (także [27])
- Chloé Greillet/ANSES 2018, Twice as many poisonings and serious cases due to mushrooms in 2017 as in 2016, Vigil’Anses6:1–3
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.176, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.178, OCR Persée
- Marcel Bon 1975, protolog Amanitopsis submembranacea, Bull.Soc.linn.Lyon44(6): 176–179, DOI 10.3406/linly.1975.10188, s.179, OCR Persée
- Chachuła i in. 2019, Grzyby wielkoowocnikowe stwierdzone w2018r. w Babiogórskim PN, Przegląd Przyrodniczy30(3): 3–26
- Ekologia.pl, Muchomor brązowooliwkowy — atlas, nazwy zwyczajowe i sezon polski
- Marek Snowarski, Grzyby.pl/GRej, Amanita submembranacea, dane obserwacyjne i bibliografia
- Species Fungorum, rekord 308592, synonimia Amanita submembranacea
- Muchomor brązowooliwkowy — polskie wykazy ochrony i obrotu
- Université Lyon1, Champignons: Amanita submembranacea, karta dydaktyczna
- API ELI Sejmu — bieżący status Dz.U.2014poz.1408
- Anna Ronikier 2012, Fungi of the Sarnia Skała massif in the Tatra Mountains, Polish Botanical Studies28, s.12–13 i16–17
- API ELI Sejmu — bieżący status Dz.U.2026poz.258
- Varga i in. 2024, Phylogenetic and morphological studies reveal large diversity and three new species in Amanita sect.Vaginatae from Europe, Mycological Progress 23, article 38, DOI 10.1007/s11557-024-01974-0
- Wojewoda 2003, Checklist of Polish larger Basidiomycetes, s.50 (PDF52)