
Jadalny

Wymaga obróbki

Na surowo trujący

Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.


Amanita battarrae to bezpierścieniowy grzyb z sekcji Vaginatae, wyróżniający się wyraźnie dwubarwnym, koncentrycznie strefowanym kapeluszem o bruzdowanym brzegu. Występuje głównie w lasach górskich i podgórskich strefy umiarkowanej, gdzie tworzy mikoryzę z drzewami iglastymi i liściastymi. Jest gatunkiem jadalnym po bezwzględnej obróbce termicznej, choć rzadko pozyskiwanym ze względu na kruchość owocników oraz ryzyko pomyłki ze śmiertelnie trującymi muchomorami.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
- Wysokość owocnika
- Owocnik ma wysokość 150 milimetrów.
Kapelusz
- Kształt
- Kapelusz może mieć kształt dzwonkowaty lub wypukły; u młodych owocników — jajowaty lub półkulisty; u dojrzałych owocników — płaski.
- Ukształtowanie powierzchni
- Powierzchnia kapelusza jest gładka.
- Pokrycie
- Powierzchnia kapelusza jest naga.
- Połysk powierzchni
- Powierzchnia kapelusza jest lśniąca.
- Lepkość i śluzowatość
- Powierzchnia kapelusza jest lepka.
- Kolor
- Kapelusz może być żółtooliwkowy, szarobrązowy lub szary.
- Obrys brzegu
- Obrys brzegu jest równy.
- Ukształtowanie powierzchni brzegu
- Brzeg kapelusza jest bruzdkowany.
- Spękania i rozdarcia brzegu
- Brzeg kapelusza jest bez spękań.
- Średnica
- Kapelusz może mieć średnicę od 40 do 120 milimetrów.
- Środek
- Środek kapelusza może być z wyraźnym garbkiem lub zagłębiony.
- Skórka
- Skórka kapelusza jest częściowo ściągalna, do połowy kapelusza.
- Obecność resztek osłony na kapeluszu
- Stwierdzono brak resztek osłony na kapeluszu.
- Układ stref i smug barwnych kapelusza
- Na kapeluszu występują koncentryczne kręgi. Strefowanie jest wyraźne.
Spód kapelusza
- Typ
- Hymenofor ma budowę blaszkową.
Blaszki przy trzonie
- Połączenie z trzonem
- Blaszki mogą być wolne od trzonu lub przyrośnięte do trzonu.
- Barwa
- Hymenofor może być białawy, biały, kremowobiały lub kremowy.
- Ostrze
- Ostrze blaszki może być całe, gładkie w obrysie lub kłaczkowate, u młodych owocników może być kłaczkowate, a u starych owocników może być ząbkowane / piłkowane.
- Naturalna barwa ostrza blaszki
- Ostrze blaszki jest białe.
- Rozstaw
- Blaszki mogą być blisko rozstawione, rzadkie, dość rzadkie lub gęste.
- Grubość blaszek
- Blaszki są grube.
- Szerokość
- Wysokość blaszek może wynosić do 7 milimetrów.
- Szerokość blaszek
- Blaszki są szerokie.
- Blaszeczki
- Stwierdzono obecność blaszeczek.
Trzon i podstawa
- Położenie
- Trzon ma położenie centralne.
- Kształt
- Trzon może mieć kształt walcowaty, zwężający się ku górze lub maczugowaty.
- Kolor
- Trzon może być biały.
Góra trzonu może być biaława. - Ukształtowanie powierzchni
- U góry powierzchnia trzonu jest bruzdowana.
- Pokrycie powierzchni
- Powierzchnia trzonu może być łuskowata.
- Barwa ornamentacji
- Ornamentacja trzonu jest szarobrązowa.
- Wnętrze
- Trzon może być pełny lub pusty.
- Długość
- Trzon może mieć długość od 50 do 200 milimetrów.
- Grubość
- Trzon może mieć grubość od 5 do 20 milimetrów.
- Pochwa
- Stwierdzono obecność pochwy.
Pierścień
- Obecność
- Pierścień nie występuje u tego gatunku.
Osłona u podstawy
- Budowa
- Osłona u podstawy trzonu jest workowata.
- Barwa pochwy i osłony u podstawy trzonu
- Osłona u podstawy trzonu jest biała.
- Krępość trzonu
- Trzon jest krępy.
- Materiał pochwy i osłony u podstawy trzonu
- Osłona u podstawy trzonu jest błoniasta.
Miąższ
- Barwa
- Miąższ może być biały, a w trzonie może być białawy.
- Smak
- Może mieć cierpki lub słaby smak.
- Odporność na przełamanie lub rozerwanie
- Miąższ jest kruchy.
- Typ konsystencji miąższu
- W kapeluszu miąższ jest mięsisty.
- Zmiana koloru
- Po uszkodzeniu miąższ nie zmienia barwy.
- Zapach
- Zapach jest przyjemny.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach iglastych, w lasach mieszanych lub w lasach liściastych.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba lub ściółka.
- Sposób wyrastania
- Owocniki mogą wyrastać pojedynczo, w rozproszonych grupach lub po kilka.
- Owocnikowanie
- Owocniki mogą pojawiać się od czerwca do września.
- Obszar występowania
- Potwierdzono występowanie w Polsce.
Jadalność i kuchnia
- Jadalność
- Jadalny
- Wymagana obróbka
- Wymaga obróbki
- Spożycie na surowo
- Na surowo trujący
Prawo
- Ochrona
- W Polsce nie podlega ochronie gatunkowej.
- Handel
- W Polsce nie jest dopuszczony do obrotu handlowego ani do produkcji przetworów grzybowych.
Z czym można pomylić
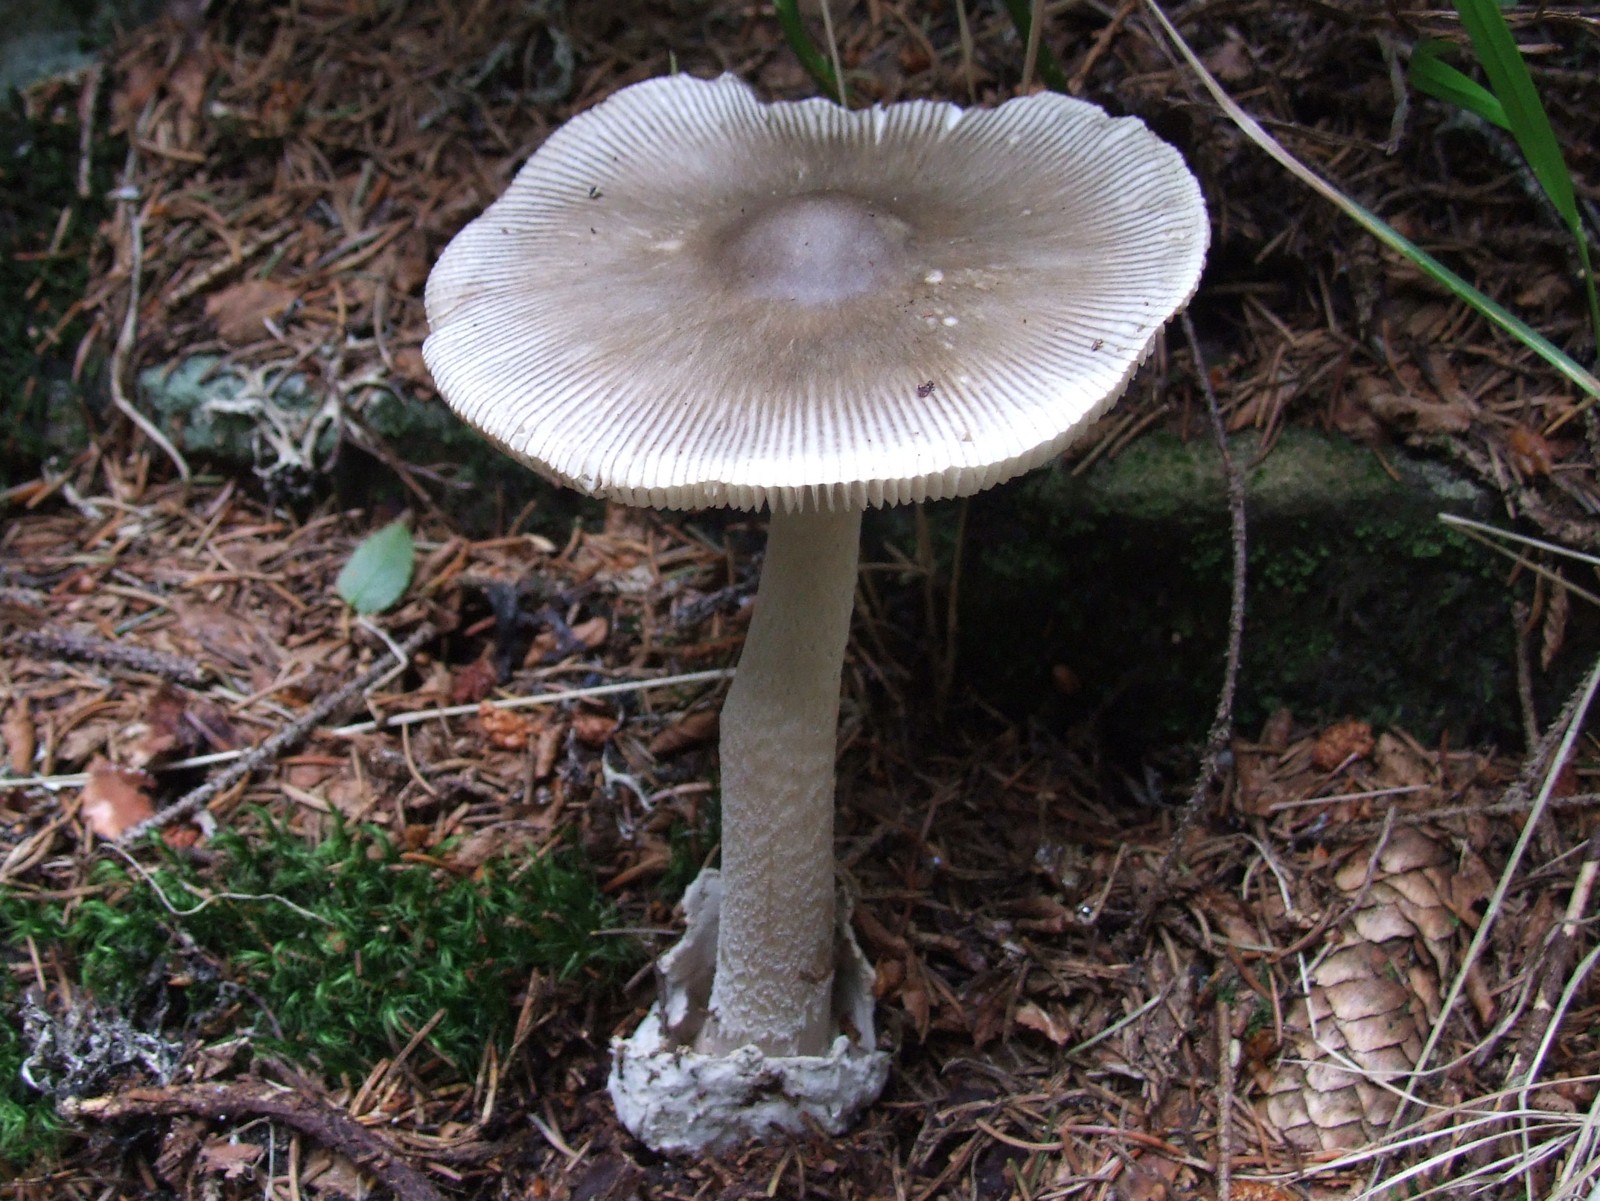
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Źródło zdjęcia · CC BY-SA 4.0Muchomor szarawy
Amanita vaginata
Najważniejsze różnice
Muchomor szary (Amanita vaginata) różni się od muchomora oliwkowego kapeluszem o jednolitym odcieniu bez koncentrycznego strefowania oraz gładkim, białym trzonem pozbawionym ciemniejszych łusek.
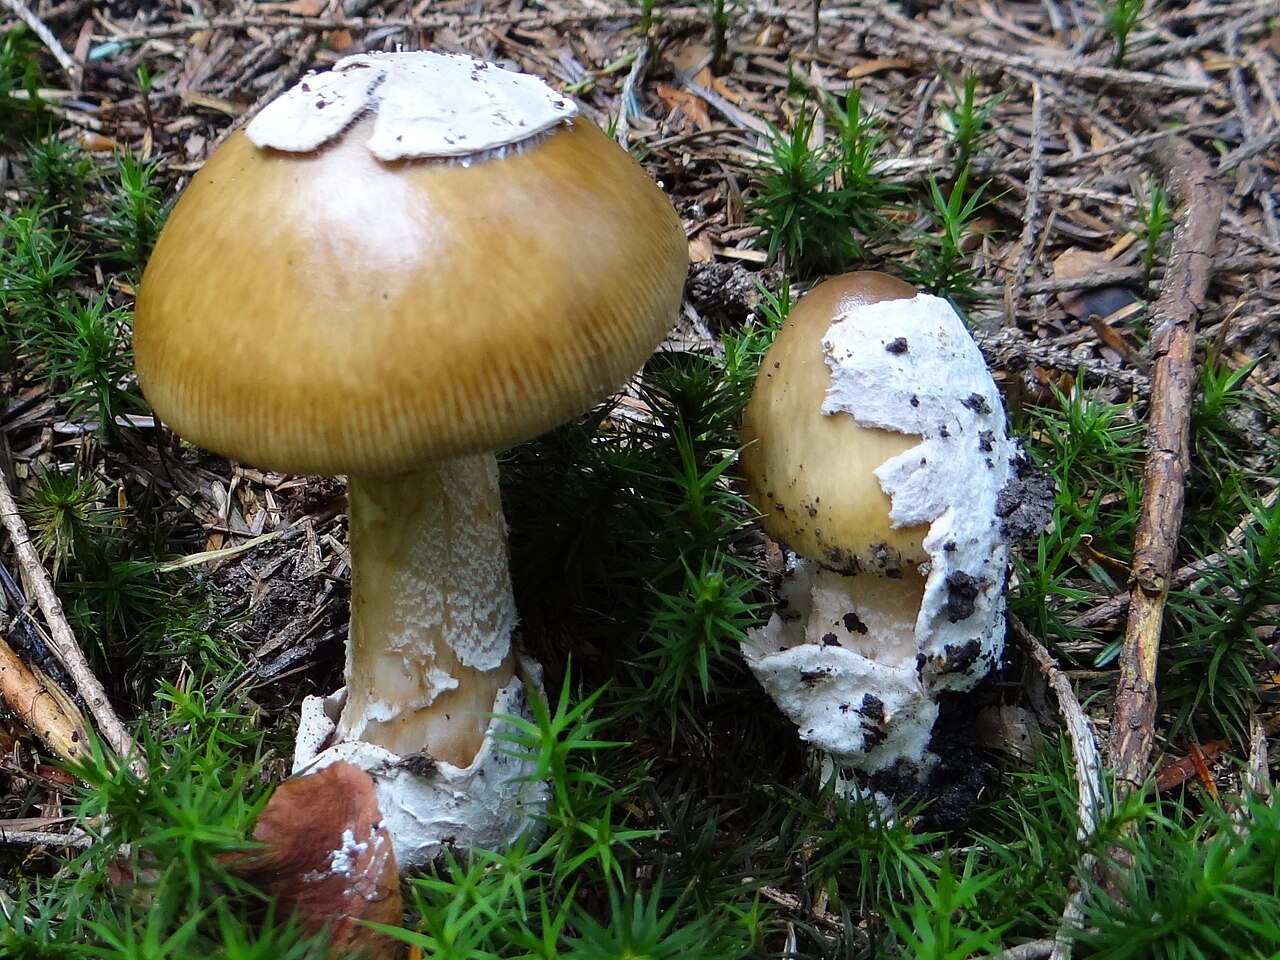
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Źródło zdjęcia · CC BY-SA 3.0Muchomor brązowooliwkowy
Amanita submembranacea
Najważniejsze różnice
Muchomor brązowooliwkowy (Amanita submembranacea) tworzy kapelusze częściej pokryte dużymi płatami osłony, a jego pochwa u podstawy trzonu wyraźnie szarzeje od strony wewnętrznej.
Amanita fulva
Najważniejsze różnice
Muchomor rdzawobrązowy (Amanita fulva) odróżnia się ciepłą, płowopomarańczową lub lisiobrązową barwą kapelusza, białymi blaszkami o niezmiennym ostrzu oraz gładkim trzonem.
FAQ
Czy Amanita battarrae jest grzybem jadalnym?
Tak, jest jadalny, ale wyłącznie po gruntownej obróbce termicznej; na surowo jest trujący.
Jakie drzewa najczęściej towarzyszą temu gatunkowi?
Najczęściej tworzy mikoryzę ze świerkami, jodłami, bukami oraz brzozami.
W jakich miesiącach można spotkać owocniki?
Główny okres owocnikowania trwa od lipca do października, z nasileniem w sierpniu.
Gdzie w Europie występuje ten muchomor?
Występuje głównie w górach Europy Środkowej i Południowej oraz na nizinach północy.
Czy ten grzyb ma pierścień na trzonie?
Nie, jako przedstawiciel sekcji Vaginatae nie wykształca pierścienia na trzonie.
Dlaczego surowe owocniki są szkodliwe?
Zawierają nietrwałe termicznie toksyny hemolityczne niszczące krwinki czerwone.
Czy Amanita battarrae jest pospolity w Polsce?
Nie, jest gatunkiem rzadkim, spotykanym głównie w rejonach podgórskich i górskich.
Skąd pochodzi nazwa gatunkowa battarrae?
Upamiętnia Giovanniego Antonia Battarrę, osiemnastowiecznego włoskiego mykologa.
Czy owocniki nadają się do transportu?
Nie, są niezwykle kruche i łatwo łamią się nawet przy delikatnym dotyku.
Do czego używano tego grzyba w rzemiośle?
W dawnych czasach barwiono nim wełnę na kolory beżowe, szare i oliwkowobrązowe.
Miłośnik
Nazwy i historia
- Obowiązująca nazwa taksonomiczna
- Amanita battarrae
- Pozostałe nazwy
- muchomor wielkopochwowy
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników ma barwę białą.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik może mieć kształt szeroko elipsoidalny, kulisty lub niemal kulisty. Zarodnik niekiedy może mieć kształt elipsoidalny. Zarodnik niekiedy może mieć kształt kulisty.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 9 do 17,7 mikrometra i szerokość od 7,2 do 15,6 mikrometra.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Doświadczenie z fenolem
- Materiał
- Miąższ owocnika
- Odczynnik
- fenol
- Wykonanie
- W opisanej próbie zastosowano fenol do wskazanego materiału.
- Warunki i braki źródłowe
W źródle nie podano: przygotowania próbki, stężenia fenolu, ilości odczynnika, temperatury, czasu odczytu, szczegółowego sposobu naniesienia odczynnika.
Obserwacja / wynik
- Wynik źródłowy
- W miąższu po zastosowaniu fenolu uzyskano barwę opisaną w źródle jako „fioletowa”.
- Wynik źródłowy
- W miąższu po zastosowaniu fenolu uzyskano barwę opisaną w źródle jako „winnoczerwonobrązowa”.
Ekologia i rozmieszczenie
- Odczyn gleby
- Preferuje gleby kwaśne.
- Drzewa liściaste w otoczeniu
- W otoczeniu rosną brzoza, dęby, buki, graby i lipa.
- Drzewa iglaste w otoczeniu
- W otoczeniu rosną świerki, jodły i sosny.
- Sposób odżywiania
- Gatunek ma sposób odżywiania ektomikoryzowy.
Zastosowania pozakulinarne
W ujęciu pozakulinarnym Amanita battarrae znajdował nieliczne, ściśle lokalne zastosowania w dawnej gospodarstwie wiejskim. W tradycjach niektórych społeczności alpejskich i karpackich dojrzałe, wysuszone fragmenty owocników bywały sporadycznie wykorzystywane w naturalnym farbiarstwie rzemieślniczym. Wodne ekstrakty z ciemniejszych fragmentów kapelusza w połączeniu z ałunem pozwalały na uzyskanie stonowanych, ziemistych odcieni beżu, popielatej szarości i oliwkowego brązu na surowej wełnie owczej oraz przędzy lnianej.
W wierzeniach i praktykach ludowych obszarów górskich w Europie Środkowej i Południowej wysuszone fragmenty pochwy i trzonu bywały niekiedy włączane do tradycyjnych mieszanek kadzidlanych stosowanych podczas przesilenia letniego lub jesiennego, mających zapewnić pomyślność wypasu bydła na halach i chronić stada przed drapieżnikami.
Współcześnie owocniki tego muchomora znajdują zastosowanie głównie jako materiał w edukacji przyrodniczej, służąc do tworzenia modeli dydaktycznych, ekspozycji muzealnych oraz zielników mykologicznych ilustrujących zróżnicowanie morfologiczne rodzaju Amanita w lasach górskich.
Historia i kultura
Amanita battarrae posiada interesującą historię w europejskiej taksonomii i literaturze mykologicznej. Epitet gatunkowy upamiętnia Giovanniego Antonia Battarrę, osiemnastowiecznego włoskiego duchownego i przyrodnika, autora fundamentalnego dzieła „Fungorum agri Ariminensis historia” z 1755 roku, które zawierało jedne z pierwszych szczegółowych rycin grzybów kapeluszowych w Europie. Przez dziesięciolecia takson ten stanowił przedmiot sporów badawczych, będąc traktowanym jako forma lub odmiana muchomora mglejastego bądź muchomora pochwiastego.
W tradycyjnych wierzeniach ludowych obszarów alpejskich grzyby z grupy pochwiaków, w tym Amanita battarrae, były często postrzegane z dystansem i obawą. Z powodu charakterystycznej pochwy u podstawy trzonu wiązano je z motywami podziemnymi, wężowymi jajami oraz magią ziemi. W folklorze tyrolskim owocniki wyrastające w pierścieniach na górskich polanach uważano za miejsca sabatów lub ślady nocnych tańców leśnych duchów.
Współcześnie gatunek ten nie odgrywa szerokiej roli w kulturze masowej, pozostając raczej symbolem bioróżnorodności starych lasów reglowych i obiektem zainteresowania regionalnych stowarzyszeń mykologicznych.
Jadalność i bezpieczeństwo
Muchomor oliwkowy uznawany jest za grzyb warunkowo jadalny, jednak w stanie surowym wykazuje właściwości trujące, wywołując zaburzenia żołądkowo-jelitowe. Bezpieczne spożycie wymaga bezwzględnej i starannej obróbki termicznej, polegającej na dokładnym obgotowaniu z obowiązkowym odlaniem wody, co neutralizuje obecne w świeżym miąższu nietrwałe termicznie toksyny. Surowe lub niedogotowane owocniki prowadzą do zatruć pokarmowych, dlatego zjedzenie ich bez właściwej obróbki jest niebezpieczne. W smaku przygotowany miąższ jest delikatny, lekko słodkawy i łagodny, o kruchej konsystencji, choć nie wyróżnia się szczególnymi walorami zapachowymi. W Polsce oraz większości krajów Europy Środkowej grzyb ten jest konsekwentnie omijany i uznawany za nieprzydatny kulinarnie, głównie z ostrożności przed groźnymi zatruciami. Z kolei w wybranych rejonach południowej Europy, w tym lokalnie we Włoszech, bywa niekiedy pozyskiwany przez doświadczonych zbieraczy, którzy cenią go jako tradycyjny dodatek po odpowiednim przegotowaniu.
Siedlisko i występowanie
Muchomor oliwkowy występuje w lasach liściastych, iglastych oraz mieszanych, tworząc związki mikoryzowe przede wszystkim z bukiem, jodłą, świerkiem oraz dębem. Preferuje gleby umiarkowanie wilgotne, najczęściej o odczynie kwaśnym lub obojętnym, bogate w ściółkę leśną. Pod względem geograficznym gatunek ten jest szeroko rozprzestrzeniony w Europie – od rejonów skandynawskich aż po basen Morza Śródziemnego – a także notowany w Ameryce Północnej. W Polsce oraz w Europie Środkowej spotykany jest głównie na terenach wyżynnych i podgórskich, szczególnie w reglu dolnym lasów karpackich i sudeckich, natomiast na nizinach pojawia się znacznie rzadziej i w dużym rozproszeniu. Na południu kontynentu jego stanowiska skupiają się w wyższych partiach pasm górskich, gdzie panuje chłodniejszy mikroklimat. Sezon owocnikowania rozpoczyna się zazwyczaj wczesnym latem, w czerwcu, i trwa nieprzerwanie przez całe lato aż do października lub pierwszych listopadowych przymrozków, przy czym największe nasilenie pojawu owocników przypada na sierpień i wrzesień.
Źródła
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jadalność
- Jadalny — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Ocena atlasowa w czeskim szerokim ujęciu A.battarrae/umbrinolutea; nie wynik doświadczenia żywieniowego.
- Spożycie na surowo
- Trujący
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; gwiazdka oznacza autorskie wskazanie hemolizyn. Ocena opracowania wtórnego,bez zidentyfikowanego gatunkowego badania składu.
- Jadalność
- Trujący
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; gwiazdka oznacza autorskie wskazanie hemolizyn. Ocena opracowania wtórnego,bez zidentyfikowanego gatunkowego badania składu.
- Wymagana obróbka
- Wymaga obróbki
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Źródłowa potrzeba obróbki,bez niepodanego czasu,temperatury lub gwarancji bezpieczeństwa.
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Amanita battarrae
Współczesna rewizja filogenetyczna sekcji Vaginatae przeprowadzona przez zespół Vargi w 2024 roku rozdzieliła Amanita battarrae oraz Amanita umbrinolutea jako dwa niezależne gatunki. W tym ujęciu nazwy Amanita pachyvolvata oraz Amanita magnivolvata zostały uznane za synonimy A. battarrae.
[9] [2] [8] [17]Rewizja historycznych zbiorów zielnikowych w Europie Środkowej wykazała, że znaczna część dawniejszych kolekcji oznaczanych jako A. battarrae w rzeczywistości reprezentowała A. umbrinolutea, natomiast materiały opisywane pod nazwą A. pachyvolvata stanowiły mieszaninę taksonów obejmującą m.in. A. battarrae, A. spadicea i A. supravolvata.
[2] [9] [17] [8]- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[17] [2] [18]
Ekologia i rozmieszczenie
- Partnerzy mikoryzowi
- Źródło wskazuje domniemany związek mikoryzowy z rośliną: damarzyk mocny (Indie).[16]
Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
Cystydy hymenialne
- Obecność cystyd w hymenium
- Cystydy w hymenium są nieobecne. [16]
Pozostałe cechy laboratoryjne
- Długość komórki ostrza blaszki
- Gruszkowate komórki ostrza blaszki mogą mieć długość od 10 do 60 mikrometrów. [20]
- Kształt innych komórek ostrza blaszki
- Komórka ostrza blaszki ma kształt gruszkowaty. [20]
- Szerokość komórki ostrza blaszki
- Gruszkowate komórki ostrza blaszki mogą mieć szerokość od 15 do 30 mikrometrów. [20]
- Obecność pileocystyd
- Pileocystydy są nieobecne w badanym materiale. [16]
- Długość komórki wewnętrznej tramy trzonu
- Komórka wewnętrznej tramy trzonu może mieć długość do 164 mikrometrów. [32]
- Szerokość komórki wewnętrznej tramy trzonu
- Komórka wewnętrznej tramy trzonu może mieć szerokość do 47 mikrometrów. [32]
- Szerokość strzępki wewnętrznej tramy trzonu
- Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [32] [16]
- Szerokość strzępki osłony całkowitej
- Strzępka osłony całkowitej może mieć szerokość od 4 do 10 mikrometrów. [20]
Skórka kapelusza
Zarodniki
- Średni iloraz długości i szerokości zarodnika
- Średni iloraz długości i szerokości zarodnika wynosi 1,2 [20]; wynosi 1,19. [32]
- Położenie wyrostka wnęki bazydiospory
- Wyrostek wnęki bazydiospory ma położenie podboczne. [32]
- Kształt wyrostka wnęki bazydiospory
- Wyrostek wnęki bazydiospory ma kształt cylindryczny. [32]
- Długość wyrostka wnęki bazydiospory
- Długość wyrostka wnęki bazydiospory może wynosić do 1,6 mikrometra. [16]
- Barwa zarodnika w mikroskopie
- Zarodnik w obrazie mikroskopowym jest hialinowy, bezbarwny i przejrzysty. [32]
- Zawartość zarodnika
- Zawartość zarodnika jest ziarnista. [32]
- Krople wewnątrz zarodnika
- W zarodniku stwierdzono obecność kropli. [32]
- Iloraz długości i szerokości zarodnika
- Iloraz długości i szerokości zarodnika może wynosić od 1 do 1,52. [32] [16]
- Kształt zarodnika
- Zarodnik może mieć kształt szeroko elipsoidalny, kulisty lub niemal kulisty. [16] [10] [1] [14] [20] [32]
Zarodnik niekiedy może mieć kształt elipsoidalny lub kulisty. [32]
Trama hymenoforu
- Szerokość strzępek tramy
- Szerokość strzępek tramy może wynosić od 3,2 do 7,5 mikrometra. [32]
- Długość rozdętej komórki tramy hymenoforu
- Rozdęta komórka tramy hymenoforu może mieć długość do 65 mikrometrów. [32]
- Szerokość rozdętej komórki tramy hymenoforu
- Rozdęta komórka tramy hymenoforu może mieć szerokość do 21 mikrometrów. [32]
Materiał i metody badań
Próba z odczynnikiem chemicznym — materiał i ograniczenia
Materiał: Miąższ suchego okazu holotypu A. magnivolvata, Aalto 1600(H), Finlandia.
Zakres odczytu: Pełny tekst.
Ograniczenia: Stężenie 2%, suchy materiał i 1–2 minutowy czas pozostają jawnie w metodzie źródłowej; nie dopowiedziano fazowego czasu każdej barwy. Natężenie początkowego fioletu jest słabe; obecny model ma tylko intense. Osobny kwalifikator zgłoszony do rozszerzenia.
[20]Dane mikroskopowe — źródło i ograniczenia
Materiał: Tulloss 1994, badanie typu Aalto 1600(H), 40 zarodników z 1 owocnika i 1 kolekcji; Qśrednie 1.19, własny wynik autora.
Zakres odczytu: Pełny tekst.
Ograniczenia: Średnia jest osobnym wynikiem, nie granicą wymiaru ani wartością wszystkich populacji.
[32]Materiał: Holotyp Aalto 1600(H), wartość średniego stosunku długości do szerokości podana przez Aalto 1974.
Zakres odczytu: Pełny tekst.
Ograniczenia: Średnia jest osobnym wynikiem, nie granicą wymiaru ani wartością wszystkich populacji.
[20]- Wyniki źródłowe — Liczba zarodników na jednej podstawce
- Liczba zarodników na jednej podstawce wynosi 3. [32]
Liczba zarodników na jednej podstawce wynosi 2. [32] [20]
Liczba zarodników na jednej podstawce wynosi 1. [32]
Liczba zarodników na jednej podstawce wynosi 4. [20] [32] [16] - Wyniki źródłowe — Długość zarodnika
- 10–14,5 µm [20]
9,8–15 µm (skrajnie 9–17,7 µm) [32]
10–12 µm [16]
10–16,5 µm (skrajnie 9–17,5 µm) [32] - Wyniki źródłowe — Iloraz długości i szerokości zarodnika
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [16]
1,07–1,36 (skrajnie 1,03–1,5) [32]
1,06–1,36 (skrajnie 1,03–1,52) [32] - Wyniki źródłowe — Szerokość zarodnika
- 8,5–12,8 µm (skrajnie do 14,5 µm) [32]
9–12 µm [16]
8–11,5 µm [20]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [32] - Wyniki źródłowe — Szerokość strzępki wewnętrznej tramy trzonu
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [32]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [16]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [32]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [32]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [32]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [32]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [32]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [32]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [32]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [32]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [32]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [32]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [32]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [32]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [32]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [32]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [32]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [32]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [32]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [32]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [32]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [32]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [32]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [32]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [32]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [32]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [16]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [16]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [16]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [16]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [16]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [16]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [16]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [16]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [16]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [16]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [16]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [16]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [16]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [16]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [16]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [16]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [16]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [16]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [16]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [20]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [20]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [20]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [20]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [20]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [20]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [20]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [20]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [32]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Nazwy i granice oznaczenia gatunku
Polskie nazwy: Wojewoda (2003, s.45) używa nazwy muchomor oliwkowy dla historycznego A. battarae, zaliczając do niego A. umbrinolutea. Snowarski dokumentuje także nazwę muchomor wielkopochwowy dla A. magnivolvata. Ta ostatnia ma znaczenie alternatywne w ujęciu synonimii Vargi i współautorów (2024). Nie przeniesiono nazwy muchomor dwubarwny: rekomendacja PTMyk z 2025 r. przypisuje ją do A. umbrinolutea. Nie znaleziono w odczytanej rekomendacji nowej jednoznacznej polskiej nazwy dla wąsko rozumianego A. battarrae.
Nazwa naukowa: Nazwa naukowa rekordu pozostaje Amanita battarrae (Boud.) Bon. Hanss i Moreau (2022) typifikują bazonim Amanitopsis vaginata var. battarrae Boud. (1902), wskazując jako lektotyp planszęV, rycinęC Battarry z 1755 r. oraz epityp JMH2021005 = LIP0004501. Publikacja podaje zbiór spod starego dębu w Vouhenans we Francji z 11 lipca 2021 r. Epityp stabilizuje znaczenie nazwy, a nie potwierdza tożsamości wszystkich dawniej tak oznaczonych okazów.
Współczesne ujęcie: Varga i współautorzy (2024) umieszczają epityp A. battarrae, holotyp A. magnivolvata Aalto 1600 oraz epityp A. pachyvolvata AB11-08-56 w jednym kladzie. Uznają te nazwy za synonimy, a A. umbrinolutea za odrębny gatunek. Ich wcześniejsze węgierskie oznaczenia battarrae okazały się umbrinolutea; pod nazwą pachyvolvata występowało kilka taksonów. Dlatego zachowano osobne pochodzenie danych fińskiego typu, późniejszej rewizji europejskiej, polskich historycznych stwierdzeń oraz indyjskiego PUN 9144.
[35] [31] [18] [34] [27] [26]Fiński holotyp: budowa owocnika i pochwy
Materiał: Aalto (1974) opisuje trzy owocniki zebrane 1 października 1972 r. w Herniemi koło Puujärvi, Karjalohja, Finlandia. Holotyp ma numer M.Aalto 1600(H). Kapelusz miał 80–115 mm średnicy, trzon 95–125×15–20 mm. Kapelusz młodych okazów był kopulasty, szary z lekkim oliwkowym odcieniem, suchy i błyszczący, z 15-milimetrową bruzdkowaną strefą brzeżną. Autorka wyraźnie zaznacza, że nie oglądała całkowicie dojrzałych owocników. Nie przypisano im z tej pracy dorosłego płaskiego kształtu.
Osłona i zmiany przy suszeniu: Pochwa była duża, workowata, filcowata, gładka po obu stronach, świeża czysto biała; około 60 mm wysoka i 5–10 mm gruba. Po dotykaniu pojawiały się drobne rdzawożółte plamy utrzymujące się po suszeniu. Pochwa pękała na 2–3 płaty 4–5 cm nad podstawą, nie rozpadając się w łatki na kapeluszu. U podstawy występowały dwie wyraźne zaokrąglone fałdy. Te dane zachowano w dokumentacji; ich wymiarów nie wpisano do wymiarów pierścienia lub łusek. Podczas suszenia kapelusz stawał się skórzastobrązowy, a rdzeń pełnego trzonu zapadał się, pozostawiając poprzeczne pasma. Nie uznano tego za stan wnętrza świeżego owocnika.
Stanowisko: Owocniki rosły 15–20 cm od siebie w zacienionym lesie liściastym z leszczyną, osiką, brzozą omszoną i brzozą brodawkowatą; w pobliżu był także świerk. W podszycie wymieniono kruszynę, wierzby, olszę szarą i czeremchę. Podłożem była warstwa liści i gałązek nad gliną. Jest to opis jednego fińskiego stanowiska. Obecność świerka w otoczeniu nie dowodzi jego mikoryzy z tym gatunkiem, a data 1 października nie ustala polskiego sezonu.
[20]Mikroskopia oryginalnego materiału Aalto
Zarodniki i podstawki: Aalto (1974) podaje zarodniki szeroko elipsoidalne, nieamyloidalne, długości 10–14,5 µm i szerokości 8–11,5 µm. W zapisie 10,0–12,1–14,5×8,0–10,1–11,5 µm wartości środkowe są średnimi, a nie dodatkowymi granicami. Średni stosunek długości do szerokości wynosi 1,2. Podstawki są maczugowate, 50–75×20–25 µm, czterozarodnikowe, z obserwowanymi także dwuzarodnikowymi. Nie zamieniono tego na zakres 2–4, który dopisywałby niepodaną w tej pracy wartość 3.
Ostrze blaszki i strzępki pochwy: Sterylne ostrze blaszek tworzy wyraźna biała kłaczkowata tkanka. Jej komórki są gruszkowate, 10–60×15–30 µm, z przewagą większych. Nie nazwano ich automatycznie cheilocystydami. W pochwie przeważały długie przeplecione strzępki szerokości 4–10 µm. Autorka nie widziała sprzążek w tym opisie pochwy. Jest to wynik „nie zaobserwowano” dotyczący określonej tkanki; nie dowód braku sprzążek w całym owocniku.
[20]Badanie typu i późniejsza rewizja Tullossa
Dostęp i materiał: Odczytano pełne autorskie konto A. magnivolvata w Amanitaceae/Dikarya, z wyraźnie rozdzielonymi danymi Tullossa (1994) i późniejszą rewizją. Oryginalnego 92-stronicowego artykułu w BHL nie pobrano z powodu HTTP403. Dane typu mają oznaczenie[40/1/1]:40 zarodników z jednego owocnika i jednej kolekcji. Zbiór łączny[140/6/4] obejmuje 140 zarodników z sześciu owocników i czterech kolekcji. Nie nazwano ich niezależnymi wynikami dla dwóch różnych gatunków ani dwiema niezależnymi populacjami typu.
Zarodniki: Dla typu podano(9–)10–16,5(–17,5)×8,5–12,8(–14,5)µm, Q=(1,03–)1,07–1,36(–1,50), średnieQ=1,19. Dla zbioru łącznego:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6)µm, Q=(1,03–)1,06–1,36(–1,52). W bazie zachowano granice typowe, skrajne i odrębność zbiorów. Zarodniki są gładkie, hialinowe, cienkościenne, nieamyloidalne; od niemal kulistych do szeroko elipsoidalnych, niekiedy elipsoidalne lub kuliste. Często mają nieco spłaszczony profil adaksjalny; olbrzymie zarodniki bywają z tej strony wklęsłe. Dziobek jest sublateralny, rzadko lateralny, walcowaty. Krople w zarodnikach nie zostały zidentyfikowane jako lipidy.
Podstawki i sprzążki: Podstawki holotypu miały 52–82×12,5–19 µm i nieznacznie pogrubione ściany do 0,5 µm. Około 50% było dwusterygmowych, 25% czterosterygmowych, 25% jednosterygmowych, rzadko trzysterygmowych; sterygmy do 10×5 µm. W późniejszym dojrzałym materiale dominowały cztery sterygmy. Sprzążki u podstaw podstawek były dość częste do częstych w holotypie i rzadsze w dojrzałym materiale. Ich obecność nie przeczy wynikowi Aalto dla strzępek pochwy: dotyczą innej tkanki i innego odczytu. Nie przeniesiono częstości na inne warianty.
Tkanki: Strzępki skórki kapelusza miały 1,8–8 µm szerokości, rozgałęziały się i były gęsto splecione, z układem podradialnym. U dojrzałego badanego owocnika skórka miała 30–70 µm i silnie żelowała jedynie przy powierzchni; w stadium guzika około 50 µm i bez zżelatynizowania. Trama blaszek była bilateralna; jej strzępki 3,2–7,5 µm, z rozdętymi odcinkami interkalarnymi do 65×21 µm. W miąższu trzonu opisano strzępki 3,2–12,5 µm oraz akrofizalidy do 164×47 µm, wąskomaczugowate, o ścianie przy wierzchołku 0,5–1 µm. Nie pomylono ich ze strzępkami skórki trzonu.
Warstwy osłony: W suszonym guziku zewnętrzna powierzchnia osłony miała 90 µm grubości, z częściowo zżelatynizowanymi wiązkami strzępek 2,5–12,8 µm. W jej wnętrzu strzępki miały 2,8–12,2 µm, a rozdęte końcowe komórki do 96×55 µm; u podstawy dojrzałego trzonu komórki osiągały 141×63 µm. W późniejszym materiale łatki osłony na dojrzałym kapeluszu miały komórki do 127×100 µm. Nie scalono różnych powierzchni, części i stadiów w jeden bezwarunkowy zakres komórki całej pochwy. Oryginały i brakujące rozróżnienia zachowano w dokumentacji rozszerzeń.
[32] [34]Indyjski PUN 9144: zakres i ograniczenia danych
Materiał i metoda: Kumar i Atri (2020) opisują zbiór PUN 9144 Jitendera Kumara z Dhaulakuan w Himachal Pradesh, Indie, 425 m n.p.m., 28 sierpnia 2013 r., w sąsiedztwie Shorea robusta. Oznaczenie opiera się na makro- i mikroskopii; nie wykazano molekularnej zgodności z epitypem Hanssa i Moreau. W badaniu zachowano oznaczenie autorów, bez przenoszenia daty i ekologii na Polskę. Odczytano metody z pierwszej strony, opis z s.34 i rycinę 8 z s.35; kontrola obrazu strony rozdzieliła to konto od kończącego się obok opisu Russula nobilis.
Wyniki: Skórka kapelusza była częściowo ściągalna do połowy; źródło nie rozstrzyga, czy chodzi o promień, czy powierzchnię. Podany ułamek zapisano bez wymyślonej podstawy. Zarodniki 10–12×9–12 µm, Q=1–1,1, z dziobkiem do 1,6 µm; podstawki 29–40×8–12 µm, czterozarodnikowe, ze sterygmami do 8,2 µm i bez sprzążek. Ostrze blaszki płodne, cystyd brak. Strzępki skórki kapelusza splecione, septowane, do 6,5 µm, w żelowej substancji; pileocystyd brak. Miąższ trzonu zawierał równoległe, hialinowe, septowane strzępki do 32 µm. Osobne źródło i materiał zachowano także tam, gdzie wynik różni się od europejskiego typu.
Domniemana mikoryza: Autorzy odnotowali organiczne połączenie grzybni ze spodu trzonu z korzeniami salu i określili związek jako domniemaną ektomikoryzę. Nie przeprowadzono w tej pracy molekularnego oznaczenia korzeni ani doświadczenia inokulacyjnego. Samej bliskości roślin nie zastąpiono pewną relacją mikoryzową ani instrukcją uprawy.
[16]Polska: występowanie i termin owocnikowania
Dane dostępne: Czeklista Wojewody (2003, s.45) podaje czerwiec–wrzesień oraz historyczne stanowiska m.in.w Cedyńskim Parku Krajobrazowym, na Chojniku, w Tatrach, koło Mikołajek i w rezerwacie Starożyn w Puszczy Augustowskiej. Wymienia lasy i buk. Miesiące zapisano wprost jako 6–9; nie wyprowadzono sezonu z dat pojedynczych zbiorów w GRej ani z zagranicznego atlasu.
Poziom potwierdzenia: W tej czekliście A. umbrinolutea jest synonimem A. battarae. Polskie stwierdzenia potwierdzają więc użycie historycznego szerokiego pojęcia. Ich zgodność ze współczesnym wąskim A. battarrae wymaga rewizji okazów. PTMyk (2025) także podkreśla potrzebę weryfikacji liczby stanowisk przy niejednolitym rozumieniu taksonu. Z tego nie wynika dowód nieobecności w Polsce. Nie obliczono współczesnej częstości występowania z dawnej czerwonej listyR.
[35] [18] [30]Źródłowa reakcja miąższu na fenol
Przebieg testu: Aalto (1974, s.94) badała miąższ suchego okazu przy użyciu 2%roztworu fenolu. Po 1–2 minutach następowała reakcja: początkowo słaby fiolet, następnie ciemnienie do barwy winnoczerwonobrązowej. W bazie są dwa uporządkowane etapy jednego testu; nie pomylono ich z naturalną zmianą po nacisku lub z nieamyloidalnością zarodników. Stężenie, suchy materiał i zakres czasu zachowano w opisie metody. Czasu 1–2 minut nie zamieniono samowolnie na punkt 90 sekund.
[20]Jadalność: sprawdzony ciąg podstaw źródłowych
Oceny autorów: Wojewoda (2003) podaje w dawnym szerokim ujęciu „Edible”. Czeski atlas nazywa gatunek jadalnym, a SFMU umieszcza A. battarrae wśród grzybów wymagających starannego gotowania ze względu na hemolizyny. First Nature odradza zbieranie, wskazując małą wiedzę o jadalności. Są to opinie i opracowania poradnikowe o różnych zakresach oznaczenia, a nie cztery niezależne eksperymenty bezpieczeństwa.
Granica potwierdzenia: W odczytanych ciągach nie dotarto do pierwotnego oznaczenia hemolizyn ani kontrolowanego badania spożycia materiału zgodnego z epitypem A. battarrae. Nie potwierdzono stąd bezpieczeństwa lub czasu gotowania w minutach. Brak odnalezionej pracy nie dowodzi nietoksyczności, fałszu oceny atlasu ani nieistnienia badań.
[35] [21] [29] [25] [34]Weryfikacja występowania — zakres i ograniczenia
Materiał: Polska, historyczne konto czeklisty Wojewody 2003, s.45. Stanowiska: Cedynia, Chojnik, Tatry, okoliceMikołajek, rezerwatStarozyn.
Zakres odczytu: Pełny tekst.
Data przeglądu: 19.10.2026.
Ograniczenia: Potwierdzony jest fakt opublikowania polskich stwierdzeń pod dawną nazwą. To nie dowód przynależności każdej kolekcji do wąskiego współczesnego A. battarrae. Nie wyprowadzono braku występowania z niepewności taksonomicznej.
[35]Materiał: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A. battarae.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[30]Zakres opracowania
Przed ukończeniem rekord wymaga uzupełnienia lub rozliczenia.
- Poszukiwanie regionów występowania wymaga rozliczenia.
Podstawa prawna i zakres oceny
Najważniejsze substancje i ich działanie
Badania ekologiczne
Dokumentacja źródłowa
Ustalenia źródła: W badaniu Tervonen i współautorów (2019) Amanita battarrae znalazła się w tabeli grzybów ektomikoryzowych z wartościami LC/0/1/1 w kolumnach IUCN/Grazed/Aband/All. Badano 36 stanowisk w środkowej Finlandii: 18 wypasanych i 18 porzuconych, podczas trzech wizyt na trzech poletkach 10 × 10 m. Wiersz odnotowuje wystąpienie w części porzuconej; nie określa krajowej częstości, konkretnego drzewa gospodarza ani weryfikacji DNA.
[36]Siedlisko i występowanie
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Polska | Kotlina Sądecka | VI–IX |
|
Źródła
- First Nature, Pat O’Reilly, Amanita battarrae (także [25])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (także [21])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (także [30])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (także [28])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (także [33])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.