
Съедобный

Требует кулинарной обработки

В сыром виде ядовит

Укажите местоположение, чтобы увидеть данные для своего региона.


Amanita battarrae (поплавок Баттарры) — шляпочный гриб из рода мухоморов, секции Vaginatae. Отличается характерной зональностью окраски шляпки с темной центральной частью и полосатым краем. Ножка лишена постоянного кольца и вырастает из пленчатой мешковидной вольвы. Обитает в умеренной зоне Евразии и Северной Америки в микоризном симбиозе с лиственными и хвойными породами. В микологической литературе традиционно классифицируется как условно-съедобный после отваривания.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
- Высота плодового тела
- Высота плодового тела: 150 mm.
Шляпка
- Форма шляпки
- у молодых плодовых тел: Форма шляпки: яйцевидный.
Форма шляпки: колокольчатый.
Форма шляпки: выпуклый.
у зрелых плодовых тел: Форма шляпки: плоский.
у молодых плодовых тел: Форма шляпки: полушаровидный. - Рельеф поверхности шляпки
- Рельеф поверхности шляпки: гладкий.
- Покров шляпки
- Покров шляпки: голая.
- Блеск поверхности шляпки
- Блеск поверхности шляпки: блестящий.
- Клейкость и слизистость шляпки
- Клейкость и слизистость шляпки: липкий.
- Цвет шляпки
- Цвет шляпки: серый.
Цвет шляпки: серо-коричневый.
Цвет шляпки: желто-оливковый. - Контур края шляпки
- Контур края шляпки: ровный.
- Рельеф поверхности края шляпки
- Рельеф поверхности края шляпки: бороздчатый.
- Трещины и разрывы края
- Трещины и разрывы края: без трещин.
- Диаметр шляпки
- Диаметр шляпки составляет 40–120 mm.
- Центр шляпки
- Центр шляпки: с выраженным бугорком.
Центр шляпки: с выраженным бугорком.
Центр шляпки: Вдавленный. - Отделяемость кожицы шляпки
- Отделяемость кожицы шляпки: частично снимается.
Отделяемость кожицы шляпки: частично снимается (до половины). - Наличие остатков покрывала на шляпке
- Наличие остатков покрывала на шляпке: отсутствует.
- Зональность окраски шляпки
- Зональность окраски шляпки: концентрический (отчётливые зоны).
Зональность окраски шляпки: концентрический.
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: пластинки.
Пластинки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: приросший к ножке (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
Прикрепление гименофора к ножке: приросший к ножке (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки).
- Цвет гименофора
- Цвет гименофора: кремовый.
Цвет гименофора: беловатая.
Цвет гименофора: кремово-белый.
Цвет гименофора: белый. - Макроскопическое строение свободного края пластинок
- Макроскопическое строение свободного края пластинок: цельные, с гладким контуром.
Макроскопическое строение свободного края пластинок: хлопьевидное.
у молодых плодовых тел: Макроскопическое строение свободного края пластинок: хлопьевидное.
у старых плодовых тел: Макроскопическое строение свободного края пластинок: зубчатое или пильчатое. - Естественный цвет края пластинки
- Естественный цвет края пластинки: белый.
- Расстояние между пластинками
- Расстояние между пластинками: близко расположенные.
Расстояние между пластинками: редко расположенные.
Расстояние между пластинками: довольно редко расположенные.
Расстояние между пластинками: близко расположенные.
Расстояние между пластинками: густо расположенные. - Толщина пластинок
- Толщина пластинок: толстый.
- Высота пластинок
- Высота пластинок: до 7 mm.
- Категория ширины пластинок
- Категория ширины пластинок: широкое.
- Наличие коротких пластиночек
- Наличие коротких пластиночек: присутствует.
Ножка и основание
- Положение ножки
- Положение ножки: центральный.
- Форма ножки
- Форма ножки: цилиндрический.
Форма ножки: сужающийся кверху.
Форма ножки: булавовидный. - Цвет ножки
- в верхней части ножки: Цвет ножки: беловатая.
Цвет ножки: белый. - Рельеф поверхности ножки
- в верхней части ножки: Рельеф поверхности ножки: бороздчатый.
- Покров поверхности ножки
- Покров поверхности ножки: чешуйчатая.
- Цвет орнаментации ножки
- Цвет орнаментации ножки: серо-коричневый.
- Внутреннее строение ножки
- Внутреннее строение ножки: сплошной.
Внутреннее строение ножки: полый. - Длина ножки
- Длина ножки: 50–200 mm.
- Диаметр ножки
- Диаметр ножки: 5–20 mm.
- Вольва
- Вольва: присутствует.
Вольва: присутствует.
Вольва: присутствует.
Вольва: присутствует.
Вольва: присутствует.
Кольцо
- Наличие кольца
- Наличие кольца: без кольца.
Наличие кольца: без кольца.
Наличие кольца: без кольца.
Наличие кольца: без кольца.
Покрывало у основания
- Строение покрывала у основания ножки
- Строение покрывала у основания ножки: мешковидная.
Строение покрывала у основания ножки: мешковидная.
Строение покрывала у основания ножки: мешковидная.
- Окраска вольвы и покрывала у основания ножки
- Окраска вольвы и покрывала у основания ножки: белый (элемент покрывала у основания ножки: вольва).
Окраска вольвы и покрывала у основания ножки: белый (элемент покрывала у основания ножки: вольва).
Окраска вольвы и покрывала у основания ножки: белый (элемент покрывала у основания ножки: вольва).
Окраска вольвы и покрывала у основания ножки: белый (элемент покрывала у основания ножки: вольва). - Коренастость ножки
- Коренастость ножки: коренастый.
- Материал вольвы и покрывала у основания ножки
- Материал вольвы и покрывала у основания ножки: перепончатый (элемент покрывала у основания ножки: вольва).
Мякоть
- Цвет мякоти
- Цвет мякоти: белый.
Цвет мякоти: беловатая (мякоть ножки). - Вкус мякоти
- Вкус мякоти: вяжущий.
Вкус мякоти: слабый. - Устойчивость мякоти к излому или разрыву
- Устойчивость мякоти к излому или разрыву: ломкий.
- Тип консистенции мякоти
- Тип консистенции мякоти: мясистый (мякоть шляпки).
- Цвет мякоти после повреждения
- Цвет мякоти после повреждения: без изменения цвета.
- Запах мякоти
- Запах мякоти: приятный (мякоть).
Где и когда растёт
- Местообитание
- Местообитание: хвойный лес.
Местообитание: смешанный лес.
Местообитание: лиственный лес. - Субстрат
- Субстрат: почва.
Субстрат: подстилка. - Характер роста плодовых тел
- Характер роста плодовых тел: одиночно.
Характер роста плодовых тел: рассеянные группы.
Характер роста плодовых тел: небольшими группами. - Период плодоношения
- Плодовые тела появляются с июня по сентябрь.
- Ареал распространения
- Ареал распространения: подтверждено.
Съедобность и кулинария
- Съедобность
- Съедобный
- Требуемая кулинарная обработка
- Требует кулинарной обработки
- Употребление в сыром виде
- В сыром виде ядовит
Законодательство
- Охрана
- В Польше вид не подлежит видовой охране.
- Торговля
- В Польше вид не допущен к торговле или производству грибной продукции.
С чем можно спутать
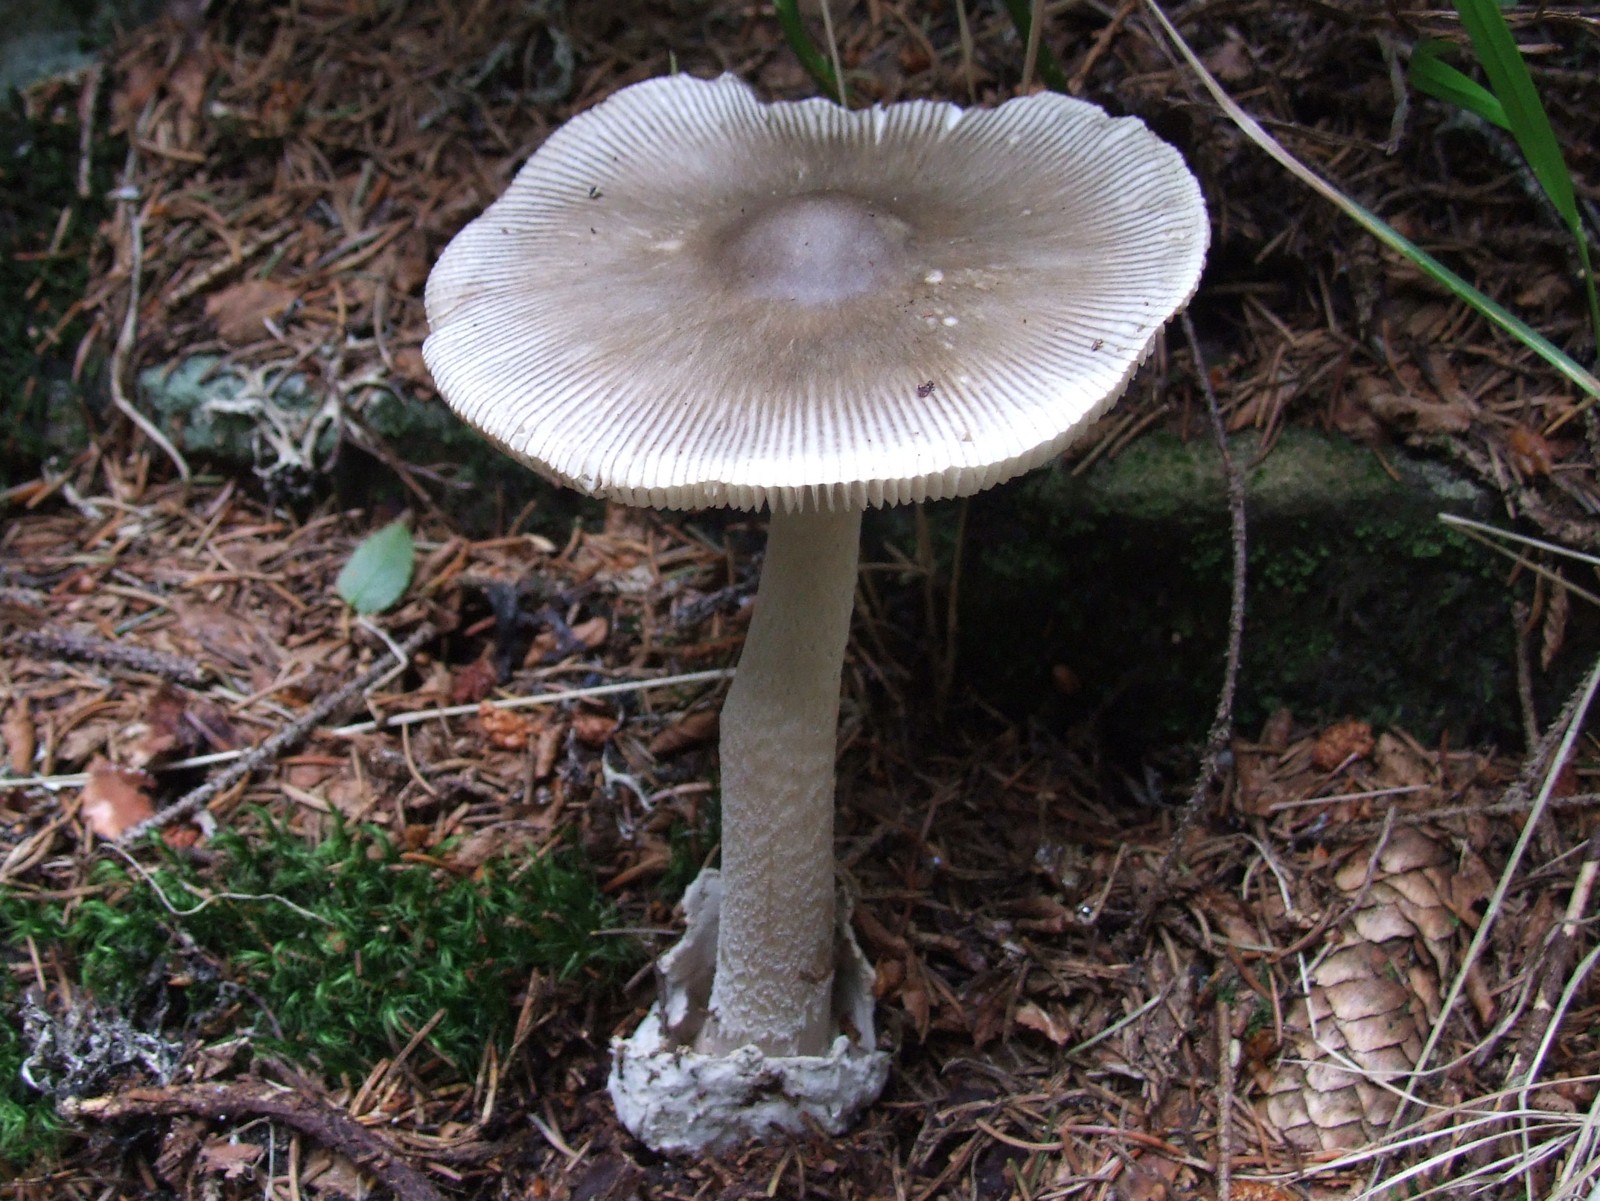
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Источник фотографии · CC BY-SA 4.0Amanita vaginata
Важнейшие отличия
Мухомор серый (Amanita vaginata) отличается от мухомора оливкового шляпкой однородного оттенка без концентрической зональности и гладкой белой ножкой, лишенной более темных чешуек.
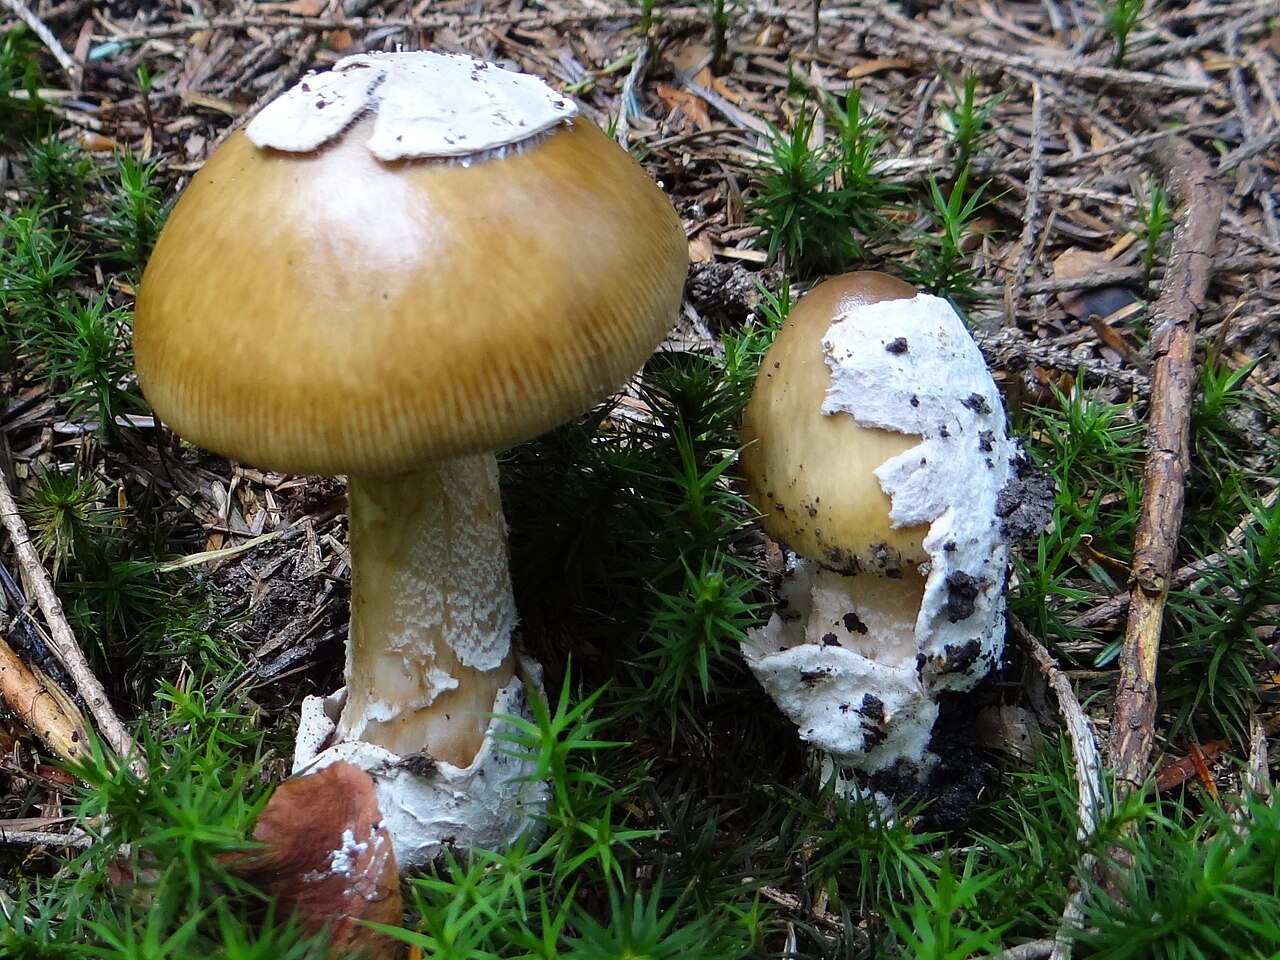
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Источник фотографии · CC BY-SA 3.0Amanita submembranacea
Важнейшие отличия
Мухомор коричнево-оливковый (Amanita submembranacea) образует шляпки, чаще покрытые крупными лоскутами покрывала, а его вольва у основания ножки отчетливо сереет с внутренней стороны.
Amanita fulva
Важнейшие отличия
Мухомор ржаво-коричневый (Amanita fulva) отличается тёплой, палево-оранжевой или лисье-коричневой окраской шляпки, белыми пластинками с неизменным краем и гладкой ножкой.
FAQ
Съедобен ли поплавок Баттарры?
Да, он съедобен, но только после обязательного предварительного отваривания со сливом воды.
Можно ли есть этот гриб в сыром виде?
Нет, сырой гриб содержит термолабильные токсины, вызывающие разрушение эритроцитов.
С какими деревьями связан этот вид?
Гриб образует микоризу с елью, сосной, пихтой, а также с дубом, буком, березой и каштаном.
В каких биотопах он чаще всего встречается?
В хвойных, смешанных и широколиственных лесах на кислых влажных почвах и окраинах болот.
Когда начинается сезон плодоношения?
Плодоношение начинается в июле и продолжается до конца октября с пиком в августе-сентябре.
Встречается ли поплавок Баттарры в горных районах?
Да, он обычен для горных лесов Альп, Карпат и Кавказа вплоть до субальпийского пояса.
В честь кого назван данный вид?
В честь итальянского священника и естествоиспытателя XVIII века Джованни Антонио Баттарры.
Использовался ли этот гриб в традиционном ремесле?
Да, из пигментов его шляпки издавна получали бежевые и серые красители для шерсти.
Как к этому грибу относятся в странах Южной Европы?
В Италии и Франции его традиционно собирают и ценят за нежный вкус отваренной мякоти.
С какими поверьями ассоциировался гриб в фольклоре?
Его вольву сравнивали со змеиной кожей, а сам гриб считали творением лесных духов.
Любитель
Названия и история
- Obowiązująca nazwa taksonomiczna
- Amanita battarrae
- Pozostałe nazwy
- muchomor wielkopochwowy
Наблюдения в домашних условиях
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: белый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: шаровидный. Форма споры: шаровидный. Форма споры: шаровидный. Форма споры: шаровидный. Форма споры: почти шаровидный. Форма споры: эллипсоидный (широкий). Форма споры: шаровидный (почти). Форма споры: эллипсоидный (широкий). Форма споры: эллипсоидный (изредка). Форма споры: шаровидный (изредка).
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий. Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 9–17,7 µm, ширина 7,2–15,6 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Опыт с фенолом
- Материал
- Мякоть плодового тела
- Реактив
- фенол
- Выполнение
- В описанном тесте фенол применялся к указанному материалу.
- Условия и пробелы в источнике
В источнике не указаны: подготовка образца, концентрация фенола, количество реактива, температура, время считывания, подробный способ нанесения реактива.
Наблюдение / результат
- Исходный результат
- В мякоти после применения фенола была получена окраска, описанная в источнике как «фиолетовая».
- Исходный результат
- В мякоти после применения фенола была получена окраска, описанная в источнике как «винно-красно-коричневая».
Экология и распространение
- Реакция почвы
- Реакция почвы: кислый.
- Лиственные деревья поблизости
- Лиственные деревья поблизости: берёза.
Лиственные деревья поблизости: дуб.
Лиственные деревья поблизости: бук.
Лиственные деревья поблизости: граб.
Лиственные деревья поблизости: липа. - Хвойные деревья поблизости
- Хвойные деревья поблизости: ель.
Хвойные деревья поблизости: пихта.
Хвойные деревья поблизости: сосна. - Способ питания
- Способ питания: эктомикоризный.
Некулинарное применение
Историческое и современное непищевое применение поплавка Баттарры зафиксировано в этнографических источниках Центральной Европы. В традиционном ремесленном крашении сельские мастера использовали зрелые и перезрелые шляпки с темным пигментом для окрашивания овечьей шерсти и льняных волокон. Путем вываривания измельченного сырья с добавлением квасцов в качестве протравы получали устойчивые мягкие бежевые, серо-коричневые и оливково-палевые тона. В Карпатском регионе и на Балканах эластичная пленчатая ткань свежей вольвы эпизодически использовалась в бытовой магии: высушенные оболочки помещали в защитные тканевые мешочки, игравшие роль символического щита или оберега от сглаза скота. В современном контексте этот вид находит практическое применение в образовательной сфере и музейном деле: его плодовые тела служат эталонными натурными образцами для создания демонстрационных слепков и макрофотографических атласов, иллюстрирующих зональность пигментации и полиморфизм рода Amanita.
История и культура
Видовой эпитет гриба дан в честь итальянского натуралиста, священника и миколога XVIII века Джованни Антонио Баттарры, опубликовавшего в 1755 году фундаментальный труд о микобиоте окрестностей Римини и внесшего важный вклад в раннюю классификацию пластинчатых грибов. На протяжении долгого времени в европейской микологии этот таксон не выделялся в качестве самостоятельного и упоминался лишь как темная зональная форма серого поплавка. В народных культурах Центральной и Южной Европы за всеми поплавками закрепился образ «змеиных» или колдовских грибов из-за необычной формы вольвы у основания ножки, напоминающей треснувшую скорлупу или сброшенную змеиную кожу. В сельских диалектах Франции и Италии существовали старинные наименования, переводимые как «кукушкино яйцо» или «змеиная шапка». Документированные крестьянские поверья связывали появление этих грибов с границами владений лесных духов, поэтому во многих деревнях собирать их избегали, опасаясь навлечь домашние неприятности или перепутать их со смертоносными сородичами, несмотря на отсутствие у самого поплавка стойкого яда.
Съедобность и безопасность
Поплавок Баттарры относится к съедобным грибам с условием строгого соблюдения правил предварительной кулинарной обработки. Свойственный виду риск обусловлен наличием в свежих тканях термолабильных гемолитических соединений, разрушающих эритроциты и провоцирующих тяжелые гастроэнтерические расстройства. Любое употребление плодовых тел в сыром виде абсолютно исключено. Безопасное употребление достигается исключительно посредством обязательного предварительного отваривания: грибы проваривают в воде не менее двадцати минут с последующим обязательным сливом всего отвара. После термической деструкции токсинов мякоть становится пригодной в пищу. Отваренный гриб отличается нежным, нейтральным, слегка сладковатым вкусом и мягкой консистенцией. Традиции потребления заметно различаются по регионам. В Восточной Европе гриб собирают редко из-за повышенной ломкости шляпок и слабой осведомленности населения. В то же время в ряде провинций Италии, Франции и Испании поплавки пользуются давним признанием среди местных грибников и активно заготавливаются наряду с другими видами группы поплавков. В странах Северной Америки гриб практически не имеет промысловой ценности.
Местообитание и распространение
Поплавок Баттарры широко распространен в бореальной и умеренной зонах Евразии, а также встречается в лесных массивах Северной Америки. Гриб образует устойчивые микоризные связи с широким кругом древесных пород, включая хвойные деревья (ель, сосна, пихта) и широколиственные виды (береза, дуб, бук, граб, благородный каштан). Основными местами его произрастания являются сырые хвойные, смешанные и широколиственные леса, старые парковые насаждения, лесные опушки и окраины переходных и верховых торфяных болот. Гриб предпочитает увлажненные кислые или слабокислые почвы, богатые гумусом, а также замшелые участки и торфянистые грунты предгорных и горных районов. В горных ландшафтах Альп, Карпат и Кавказа вид регулярно поднимается до верхней границы лесного пояса и субальпийских зарослей. Плодоношение в равнинных районах Центральной и Восточной Европы длится с середины июля до конца октября, достигая наибольшей массовости в августе и сентябре. В северных широтах и таежных сообществах сезон выражен компактно и обычно завершается в сентябре, тогда как в условиях теплого климата Средиземноморья и на юге Европы плодовые тела могут эпизодически появляться до конца ноября при достаточной влажности.
Источники
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Исследователь
Съедобность и кулинария
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Съедобность
- Съедобный — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Оценка из атласа в чешском широком понимании A.battarrae/umbrinolutea; не результат пищевого эксперимента.
- Употребление в сыром виде
- Ядовитый
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; звёздочка означает указание авторами на гемолизины. Оценка из вторичного источника, без идентифицированного исследования видового состава.
- Съедобность
- Ядовитый
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; звёздочка означает указание авторами на гемолизины. Оценка из вторичного источника, без идентифицированного исследования видового состава.
- Требуемая кулинарная обработка
- Требует кулинарной обработки
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Указанная в источнике необходимость кулинарной обработки, без неуказанных времени, температуры или гарантии безопасности.
Научные названия и таксономия
- Действующее научное название
Amanita battarrae
Научные названия и таксономия
Правильным научным названием таксона является Amanita battarrae (Boud.) Bon, классифицированный в ранге вида в пределах семейства мухоморовых (Amanitaceae). Оно было образовано на основе базионима Amanitopsis battarrae Boud. 1902 года.
Научные названия и таксономия
Современная филогенетическая ревизия секции Vaginatae, проведенная коллективом Варги в 2024 году, разделила Amanita battarrae и Amanita umbrinolutea как два самостоятельных вида. В этой трактовке названия Amanita pachyvolvata и Amanita magnivolvata были признаны синонимами A. battarrae.
Научные названия и таксономия
Ревизия исторических гербарных сборов в Центральной Европе показала, что значительная часть прежних коллекций, определявшихся как A. battarrae, в действительности представляла A. umbrinolutea, тогда как материалы, описанные под названием A. pachyvolvata, представляли собой смесь таксонов, включавшую в том числе A. battarrae, A. spadicea и A. supravolvata.
Научные названия и таксономия
Таксономическая история вида включает последовательные изменения ранга: от понимания в качестве разновидности через повышение до ранга вида Риелем в 1907 году до формальной комбинации в роде Amanita, опубликованной Марселем Боном в 1985 году.
Материал и методы научных исследований
При анатомических исследованиях азиатского материала применяли световую микроскопию в реактиве Мельцера и сканирующую электронную микроскопию при увеличениях от 3000× до 15000×.
Материал и методы научных исследований
Ревизия европейской секции Vaginatae 2024 года основывалась на секвенировании четырех локусов ДНК (ITS, LSU, RPB1, TEF1-α) и микроскопическом анализе тканей вольвы и размеров спор в выборках, насчитывающих по 30 измерений на образец.
- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[18] [2] [19]
Экология и распространение
- Микоризные партнёры
- Индия, предполагаемая микоризная связь по данным источника, нет документированного подтверждения микоризы по результатам исследования корней, ограничено наблюдением из источника: Микоризные партнёры: Shorea robusta. [29]
Лабораторная диагностика
Dane ustrukturyzowane
Базидии
- Число спор на базидии
- Число спор на базидии составляет 4. [17]
Число спор на базидии составляет 1. [34]
Число спор на базидии составляет 4. [21]
Число спор на базидии составляет 2. [34]
Число спор на базидии составляет 4. [34]
Число спор на базидии составляет 2. [21]
Число спор на базидии составляет 3. [34]
Гимениальные цистиды
- Наличие цистид в гимении
- Наличие цистид в гимении: отсутствует. [29]
Прочие лабораторные признаки
- Длина клетки края пластинки
- Длина клетки края пластинки: 10–60 µm. [21]
- Форма других клеток края пластинки
- Форма других клеток края пластинки: грушевидные. [21]
- Ширина клетки края пластинки
- Ширина клетки края пластинки: 15–30 µm. [21]
- Фертильность края пластинок
- Фертильность края пластинок: стерильная. [21]
Фертильность края пластинок: плодоносящее. [29] - Наличие пилеоцистид
- Наличие пилеоцистид: отсутствует. [29]
- Длина клетки внутренней трамы ножки
- Длина клетки внутренней трамы ножки: до 164 µm. [34]
- Ширина клетки внутренней трамы ножки
- Ширина клетки внутренней трамы ножки: до 47 µm. [34]
- Ширина гифы внутренней трамы ножки
- Ширина гифы внутренней трамы ножки: 3,2–12,5 µm. [34]
Ширина гифы внутренней трамы ножки: до 32 µm. [29] - Ширина гифы общего покрывала
- Ширина гифы общего покрывала: 4–10 µm. [21]
Кожица шляпки
- Расположение гиф кожицы шляпки
- Расположение гиф кожицы шляпки: переплетённые. [34]
Расположение гиф кожицы шляпки: переплетённые. [29] - Ширина элементов кожицы шляпки
- Ширина элементов кожицы шляпки: 1,8–8 µm. [34]
Ширина элементов кожицы шляпки: до 6,5 µm. [29] - Ветвление гифы кожицы
- Ветвление гифы кожицы: разветвлённый. [34]
- Перегородки гиф кожицы
- Перегородки гиф кожицы: с перегородками. [29]
- Погружение гиф кожицы в желатинозное вещество
- Погружение гиф кожицы в желатинозное вещество: присутствует. [29]
Споры
- Среднее отношение длины споры к ширине
- Среднее отношение длины споры к ширине: 1,2 (среднее значение). [21]
Среднее отношение длины споры к ширине: 1,19 (среднее значение). [34] - Наличие придатка рубчика базидиоспоры
- Наличие придатка рубчика базидиоспоры: присутствует. [34]
Наличие придатка рубчика базидиоспоры: присутствует. [29] - Положение апикулюса базидиоспоры
- Положение апикулюса базидиоспоры: почти боковой. [34]
- Форма хилярного отростка базидиоспоры
- Форма хилярного отростка базидиоспоры: цилиндрический. [34]
- Длина хилярного отростка базидиоспоры
- Длина хилярного отростка базидиоспоры: до 1,6 µm. [29]
- Цвет спор под микроскопом
- Цвет спор под микроскопом: гиалиновый. [34]
- Содержимое споры
- Содержимое споры: зернистая. [34]
- Капли внутри споры
- Капли внутри споры: присутствует. [34]
- Длина споры
- Длина споры: 9–17,5 µm. [34]
Длина споры: 10–14,5 µm. [21]
Длина споры: 9–17,7 µm. [34]
Длина споры: 10–12 µm. [17] - Отношение длины споры к ширине
- Отношение длины споры к ширине: 1,03–1,52. [34]
Отношение длины споры к ширине: 1,03–1,5. [34]
Отношение длины споры к ширине: 1–1,1. [17] - Форма споры
- Форма споры: шаровидный. [17]
Форма споры: шаровидный. [11]
Форма споры: шаровидный. [1]
Форма споры: шаровидный. [15]
Форма споры: почти шаровидный. [15]
Форма споры: эллипсоидный (широкий). [21]
Форма споры: шаровидный (почти). [34]
Форма споры: эллипсоидный (широкий). [34]
Форма споры: эллипсоидный (изредка). [34]
Форма споры: шаровидный (изредка). [34] - Поверхность споры
- Поверхность споры: гладкий. [17]
Поверхность споры: гладкий. [11]
Поверхность споры: гладкий. [1]
Поверхность споры: гладкий. [34]
Трама гименофора
- Тип трамы гименофора
- Тип трамы гименофора: билатеральная. [17]
Тип трамы гименофора: билатеральная. [34] - Ширина гиф трамы
- Ширина гиф трамы: 3,2–7,5 µm. [34]
- Длина вздутой клетки трамы гименофора
- Длина вздутой клетки трамы гименофора: до 65 µm. [34]
- Ширина вздутой клетки трамы гименофора
- Ширина вздутой клетки трамы гименофора: до 21 µm. [34]
Материал и методы исследований
Проба с химическим реактивом — материал и ограничения
Materiał: Мякоть сухого образца голотипа A.magnivolvata,Aalto 1600(H),Финляндия.
Zakres odczytu: Полный текст.
Ograniczenia: Концентрация 2%,сухой материал и 1–2 минутное время остаются явно в исходном методе; фазовое время каждой окраски не уточнено. Интенсивность исходного фиолетового слабая; текущая модель имеет только intense. Отдельный квалификатор заявлен на расширение.
Микроскопические данные — источник и ограничения
Materiał: Tulloss 1994,исследование типа Aalto 1600(H),40 спор из 1 плодового тела и 1 коллекции;Qсреднее 1.19,собственный результат автора.
Zakres odczytu: Полный текст.
Ograniczenia: Среднее является отдельным результатом, не пределом размера и не значением для всех популяций.
Микроскопические данные — источник и ограничения
Materiał: Голотип Aalto 1600(H),значение среднего отношения длины к ширине, указанное Aalto 1974.
Zakres odczytu: Полный текст.
Ograniczenia: Среднее является отдельным результатом, не пределом размера и не значением для всех популяций.
- Результаты, приведённые в источниках — Число спор на базидии
- Liczba zarodników na jednej podstawce wynosi 3. [34]
Liczba zarodników na jednej podstawce wynosi 2. [34] [21]
Liczba zarodników na jednej podstawce wynosi 1. [34]
Liczba zarodników na jednej podstawce wynosi 4. [21] [34] [17] - Результаты, приведённые в источниках — Длина споры
- 10–14,5 µm [21]
9,8–15 µm (skrajnie 9–17,7 µm) [34]
10–12 µm [17]
10–16,5 µm (skrajnie 9–17,5 µm) [34] - Результаты, приведённые в источниках — Отношение длины споры к ширине
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [17]
1,07–1,36 (skrajnie 1,03–1,5) [34]
1,06–1,36 (skrajnie 1,03–1,52) [34] - Результаты, приведённые в источниках — Ширина споры
- 8,5–12,8 µm (skrajnie do 14,5 µm) [34]
9–12 µm [17]
8–11,5 µm [21]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [34] - Результаты, приведённые в источниках — Ширина гифы внутренней трамы ножки
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [34]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [17]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [34]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [34]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [34]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [34]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [34]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [34]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [34]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [34]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [34]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [34]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [17]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [17]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [17]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [17]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [17]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [17]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [17]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [17]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [17]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [17]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [17]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [17]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [17]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [17]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [17]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [17]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [17]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [17]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [17]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [21]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [21]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [21]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [21]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [21]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [21]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [21]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [21]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [34]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Названия и границы определения вида
Польские названия: Воевода (2003, с.45) использует название muchomor oliwkowy для исторического A. battarae, включая в него A. umbrinolutea. Сноварски также документирует название muchomor wielkopochwowy для A. magnivolvata. Последнее имеет альтернативное значение в трактовке синонимии Варги и соавторов (2024). Название muchomor dwubarwny не переносилось: рекомендация PTMyk от 2025 г. закрепляет его за A. umbrinolutea. В изученной рекомендации не обнаружено нового однозначного польского названия для узко понимаемого A. battarrae.
Научное название: Научным названием записи остается Amanita battarrae (Boud.) Bon. Хансс и Моро (2022) типифицируют базоним Amanitopsis vaginata var. battarrae Boud. (1902), указывая в качестве лектотипа табл. V, рис. C Баттарры от 1755 г., а также эпитип JMH2021005 = LIP0004501. В публикации приводится сбор из-под старого дуба в Вуэнане во Франции от 11 июля 2021 г. Эпитип стабилизирует значение названия, но не подтверждает идентичность всех ранее определенно так образцов.
Современное понимание: Варга и соавторы (2024) помещают эпитип A. battarrae, голотип A. magnivolvata Аалто 1600 и эпитип A. pachyvolvata AB11-08-56 в один клад. Они признают эти названия синонимами, а A. umbrinolutea — отдельным видом. Их более ранние венгерские определения battarrae оказались umbrinolutea; под названием pachyvolvata скрывалось несколько таксонов. Поэтому сохранено раздельное происхождение данных финского типа, последующей европейской ревизии, польских исторических находок и индийского PUN 9144.
Финский голотип: строение плодового тела и вольвы
Материал: Аалто (1974) описывает три плодовых тела, собранных 1 октября 1972 г. в Херниеми близ Пууярви, Карьялохья, Финляндия. Голотип имеет номер M.Aalto 1600(H). Шляпка имела диаметр 80–115 мм, ножка 95–125×15–20 мм. Шляпка молодых экземпляров была выпуклой, серой с легким оливковым оттенком, сухой и блестящей, с 15-миллиметровой бороздчатой краевой зоной. Автор прямо указывает, что не наблюдала полностью зрелых плодовых тел. На основе этой работы им не приписывалась взрослая плоская форма.
Покрывало и изменения при высушивании: Вольва была крупной, мешковидной, войлочной, гладкой с обеих сторон, в свежем виде чисто белой; около 60 мм высотой и 5–10 мм толщиной. От прикосновений появлялись мелкие ржаво-желтые пятна, сохранявшиеся после высушивания. Вольва разрывалась на 2–3 лопасти на высоте 4–5 см от основания, не распадаясь на лоскутки на шляпке. У основания имелись две отчетливые округлые складки. Эти данные сохранены в документации; их размеры не вносились в размеры кольца или чешуек. При высушивании шляпка становилась кожисто-коричневой, а сердцевина сплошной ножки оседала, оставляя поперечные тяжи. Это не расценивалось как состояние сердцевины свежего плодового тела.
Местообитание: Плодовые тела росли на расстоянии 15–20 см друг от друга в затененном лиственном лесу с лещиной, осиной, березой пушистой и березой повислой; поблизости также была ель. В подлеске отмечены крушина, ивы, ольха серая и черемуха. Субстратом служил слой листьев и веточек поверх глины. Это описание одного финского местонахождения. Присутствие ели по соседству не доказывает ее микоризы с этим видом, а дата 1 октября не определяет польский сезон.
Микроскопия оригинального материала Аалто
Споры и базидии: Аалто (1974) указывает споры широкоэллипсоидальные, неамилоидные, длиной 10–14,5 µm и шириной 8–11,5 µm. В записи 10,0–12,1–14,5×8,0–10,1–11,5 µm средние значения являются средними, а не дополнительными пределами. Среднее отношение длины к ширине составляет 1,2. Базидии булавовидные, 50–75×20–25 µm, четырехспоровые, при этом наблюдались также двухспоровые. Это не заменялось на диапазон 2–4, который приписывал бы неуказанное в этой работе значение 3.
Край пластинки и гифы вольвы: Стерильный край пластинок образует отчетливая белая хлопьевидная ткань. Ее клетки грушевидные, 10–60×15–30 µm, с преобладанием более крупных. Они не назывались автоматически хейлоцистидами. В вольве преобладали длинные переплетенные гифы шириной 4–10 µm. Автор не наблюдала пряжек в этом описании вольвы. Это результат «не наблюдались», относящийся к конкретной ткани, а не доказательство отсутствия пряжек во всем плодовом теле.
Исследование типа и более поздняя ревизия Туллосса
Доступ и материал: Прочитана полная авторская учётная запись A. magnivolvata в Amanitaceae/Dikarya, с чётко разделёнными данными Туллосса (1994) и более поздней ревизией. Оригинальная 92-страничная статья в BHL не была загружена из-за HTTP403. Данные типа имеют обозначение[40/1/1]:40 спор из одного плодового тела и одной коллекции. Объединённая выборка[140/6/4] включает 140 спор из шести плодовых тел и четырёх коллекций. Они не названы независимыми результатами для двух разных видов или двумя независимыми популяциями типа.
Споры: Для типа указано(9–)10–16,5(–17,5)×8,5–12,8(–14,5) мкм, Q=(1,03–)1,07–1,36(–1,50), среднееQ=1,19. Для объединённой выборки:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6) мкм, Q=(1,03–)1,06–1,36(–1,52). В базе сохранены типичные границы, крайние пределы и обособленность выборок. Споры гладкие, гиалиновые, тонкостенные, неамилоидные; от почти шаровидных до широкоэллипсоидных, иногда эллипсоидные или шаровидные. Часто имеют слегка уплощённый адаксиальный профиль; гигантские споры бывают с этой стороны вогнутыми. Апикулюс сублатеральный, редко латеральный, цилиндрический. Капли в спорах не были идентифицированы как липиды.
Базидии и пряжки: Базидии голотипа имели 52–82×12,5–19 мкм и незначительно утолщённые стенки до 0,5 мкм. Около 50% были двухстеригмовыми,25% четырёхстеригмовыми,25% одностеригмовыми, редко трёхстеригмовыми; стеригмы до 10×5 мкм. В более позднем зрелом материале преобладали четыре стеригмы. Пряжки у основания базидий были довольно частыми до частых в голотипе и более редкими в зрелом материале. Их присутствие не противоречит результату Аалто для гиф вольвы: они относятся к другой ткани и другому наблюдению. Частота встречаемости не переносилась на другие варианты.
Ткани: Гифы кожицы шляпки имели ширину 1,8–8 мкм, ветвились и были густо переплетены, с субрадиальным расположением. У зрелого исследованного плодового тела кожица имела толщину 30–70 мкм и сильно желатинизировалась только у поверхности; на стадии пуговки — около 50 мкм и без желатинизации. Трама пластинок была билатеральной; её гифы 3,2–7,5 мкм, с вздутыми интеркалярными участками до 65×21 мкм. В мякоти ножки описаны гифы 3,2–12,5 мкм и акрофизалиды до 164×47 мкм, узкобулавовидные, со стенкой у верхушки 0,5–1 мкм. Их не спутали с гифами кожицы ножки.
Слои покрывала: В высушенной пуговке внешняя поверхность покрывала имела толщину 90 мкм, с частично желатинизированными пучками гиф 2,5–12,8 мкм. В его толще гифы имели ширину 2,8–12,2 мкм, а вздутые концевые клетки — до 96×55 мкм; у основания зрелой ножки клетки достигали 141×63 мкм. В более позднем материале лоскутки покрывала на зрелой шляпке имели клетки до 127×100 мкм. Различные поверхности, части и стадии не объединялись в единый безусловный диапазон клеток всей вольвы. Оригиналы и недостающие разграничения сохранены в документации расширений.
Индийский PUN 9144: объём и ограничения данных
Материал и метод: Кумар и Атри (2020) описывают сбор PUN 9144 Джитендера Кумара из Дхаулакуана в Химачал-Прадеш, Индия,425 м над ур. м.,28 августа 2013 г., по соседству с Shorea robusta. Определение основано на макро- и микроскопии; молекулярного соответствия с эпитипом Хансса и Моро не показано. В исследовании сохранено авторское определение, без переноса даты и экологии на Польшу. Прочитаны методы с первой страницы, описание со с.34 и рисунок 8 со с.35; сверка изображения страницы отделила эту учётную запись от оканчивающегося рядом описания Russula nobilis.
Результаты: Кожица шляпки частично снималась до половины; источник не уточняет, идёт ли речь о радиусе или площади. Указанная доля записана без домысливания основы. Споры 10–12×9–12 мкм, Q=1–1,1, с апикулюсом до 1,6 мкм; базидии 29–40×8–12 мкм, четырёхспоровые, со стеригмами до 8,2 мкм и без пряжек. Край пластинки фертильный, цистиды отсутствуют. Гифы кожицы шляпки переплетённые, септированные, до 6,5 мкм, в студенистом веществе; пилеоцистиды отсутствуют. Мякоть ножки содержала параллельные, гиалиновые, септированные гифы до 32 мкм. Отдельный источник и материал сохранены также там, где результат отличается от европейского типа.
Предполагаемая микориза: Авторы отметили органическое соединение мицелия из основания ножки с корнями сала и охарактеризовали связь как предполагаемую эктомикоризу. В этой работе не проводилось молекулярное определение корней или эксперимент по инокуляции. Само по себе соседство растений не заменялось достоверной микоризной связью или инструкцией по выращиванию.
Польша: распространение и сроки плодоношения
Доступные данные: Чек-лист Воеводы (2003, с.45) указывает июнь–сентябрь и исторические местонахождения, в т. ч. в Цедынском ландшафтном парке, на Хойнике, в Татрах, около Миколаек и в заповеднике Старожин в Августовской пуще. Упоминаются леса и бук. Месяцы записаны прямо как 6–9; сезон не выводился из дат отдельных сборов в GRej или из зарубежного атласа.
Уровень подтверждения: В этом чек-листе A. umbrinolutea является синонимом A. battarae. Польские находки подтверждают, таким образом, использование исторического широкого понимания. Их соответствие современному узкому A. battarrae требует ревизии образцов. PTMyk (2025) также подчёркивает необходимость проверки числа местонахождений при неоднородном понимании таксона. Из этого не следует доказательство отсутствия в Польше. Современная частота встречаемости не рассчитывалась на основе старого красного списка R.
Исходная реакция мякоти на фенол
Ход теста: Аалто (1974, с.94) исследовала мякоть сухого образца с использованием 2% раствора фенола. Через 1–2 минут происходила реакция: сначала слабый фиолетовый, затем потемнение до винно-красно-коричневого цвета. В базе представлены два упорядоченных этапа одного теста; их не спутали с естественным изменением при надавливании или с неамилоидностью спор. Концентрация, сухой материал и диапазон времени сохранены в описании метода. Время 1–2 минут не заменялось произвольно на отметку 90 секунд.
Съедобность: проверенная цепочка источниковых оснований
Оценки авторов: Воевода (2003) указывает в старом широком понимании «Edible». Чешский атлас называет вид съедобным, а SFMU помещает A. battarrae в число грибов, требующих тщательного отваривания из-за гемолизинов. First Nature не рекомендует сбор, указывая на недостаток сведений о съедобности. Это мнения и справочные руководства с разным объёмом определения, а не четыре независимых эксперимента по безопасности.
Граница подтверждения: В изученных источниках не обнаружено первичного определения гемолизинов или контролируемого исследования употребления в пищу материала, соответствующего эпитипу A. battarrae. Отсюда безопасность или время отваривания в минутах не подтверждены. Отсутствие найденной работы не доказывает нетоксичности, ошибочности оценки атласа или несуществования исследований.
Верификация распространения — охват и ограничения
Материал: Polska,historyczne konto czeklisty Wojewody 2003,s.45. Stanowiska:Cedynia,Chojnik,Tatry,okoliceMikołajek,rezerwatStarozyn.
Объём изучения: Полный текст.
Дата проверки: 19.10.2026.
Ограничения: Подтверждён факт публикации польских находок под старым названием. Это не доказательство принадлежности каждой коллекции к узкому современному A.battarrae. Отсутствие распространения не выводилось из таксономической неопределённости.
Верификация распространения — охват и ограничения
Материал: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A.battarae.
Объем изучения: Фрагменты источников.
Изучен фрагмент источника; полный текст и методы не верифицировались.
Дата обзора: 21.10.2026.
Ограничения: Исходное определение и объем понятия сохранены. Новое исследование образцов или изучение всех цитируемых источником публикаций не заявлялись.
Объем разработки
Перед завершением запись требует дополнения или урегулирования.
- Поиск регионов произрастания требует учета.
Правовая основа и объём оценки
Основные вещества и их действие
Экологические исследования
Документация источников
Выводы источника: В исследовании Тервонен и соавторов (2019) Amanita battarrae попала в таблицу эктомикоризных грибов со значениями LC/0/1/1 в столбцах IUCN/Grazed/Aband/All. Исследовалось 36 местонахождений в центральной Финляндии: 18 выпасаемых и 18 заброшенных, в ходе трех визитов на трех пробных площадках 10 × 10 м. Строка фиксирует обнаружение в заброшенной части; она не определяет национальную частоту встречаемости, конкретное дерево-хозяина или проверку ДНК.
Местообитание и распространение
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Плодоношение | Источники |
|---|---|---|---|
| Польша | Сондецкая котловина | VI–IX |
|
Источники
- First Nature, Pat O’Reilly, Amanita battarrae (także [26])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (także [22])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (także [32])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (także [30])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- Nr 26 — materiał, metoda i dokładny wynik źródła
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (także [35])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.