
Їстівний

Потребує обробки

У сирому вигляді отруйний

Установіть місцезнаходження, щоб побачити дані для свого регіону.


Amanita battarrae — вид грибів із секції поплавків родини мухоморових. Плодове тіло має характерну смугасту шапку з темнішою центральною зоною, ламку структуру без кільця на ніжці та добре виражену мішкоподібну піхву біля основи. Належить до умовно-їстівних грибів, поширених переважно в помірних лісових широтах Європи.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
- Висота плодового тіла
- Висота плодового тіла: 150 mm.
Шапинка
- Форма шапинки
- у молодих плодових тіл: Форма шапинки: яйцеподібний.
Форма шапинки: дзвоникоподібний.
Форма шапинки: опуклий.
у зрілих плодових тіл: Форма шапинки: плоский.
у молодих плодових тіл: Форма шапинки: напівкулястий. - Рельєф поверхні шапинки
- Рельєф поверхні шапинки: гладенький.
- Покрив шапинки
- Покрив шапинки: гола.
- Блиск поверхні шапинки
- Блиск поверхні шапинки: блискучий.
- Клейкість і слизистість шапинки
- Клейкість і слизистість шапинки: липкий.
- Колір шапинки
- Колір шапинки: сірий.
Колір шапинки: сіро-коричневий.
Колір шапинки: жовто-оливковий. - Контур краю шапинки
- Контур краю шапинки: рівний.
- Рельєф поверхні краю шапинки
- Рельєф поверхні краю шапинки: борознистий.
- Тріщини та розриви краю
- Тріщини та розриви краю: без тріщин.
- Діаметр шапинки
- Діаметр шапинки становить 40–120 mm.
- Центр шапинки
- Центр шапинки: з виразним горбком.
Центр шапинки: з виразним горбком.
Центр шапинки: Вдавлений. - Відокремлюваність шкірки шапинки
- Відокремлюваність шкірки шапинки: частково знімається.
Відокремлюваність шкірки шапинки: частково знімається (до половини). - Наявність залишків покривала на шапинці
- Наявність залишків покривала на шапинці: відсутній.
- Зональність забарвлення шапинки
- Зональність забарвлення шапинки: концентричний (виразні зони).
Зональність забарвлення шапинки: концентричний.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: пластинки.
Пластинки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
Прикріплення гіменофора до ніжки: прирослий до ніжки (пластинки).
Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
Прикріплення гіменофора до ніжки: прирослий до ніжки (пластинки).
Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
- Колір гіменофора
- Колір гіменофора: кремовий.
Колір гіменофора: білувате.
Колір гіменофора: кремово-білий.
Колір гіменофора: білий. - Макроскопічна будова вільного краю пластинок
- Макроскопічна будова вільного краю пластинок: цільні, з гладким контуром.
Макроскопічна будова вільного краю пластинок: пластівчасте.
у молодих плодових тіл: Макроскопічна будова вільного краю пластинок: пластівчасте.
у старих плодових тіл: Макроскопічна будова вільного краю пластинок: зубчасте або пилчасте. - Природний колір краю пластинки
- Природний колір краю пластинки: білий.
- Відстань між пластинками
- Відстань між пластинками: близько розташовані.
Відстань між пластинками: рідко розташовані.
Відстань між пластинками: досить рідко розташовані.
Відстань між пластинками: близько розташовані.
Відстань між пластинками: густо розташовані. - Товщина пластинок
- Товщина пластинок: товстий.
- Висота пластинок
- Висота пластинок: до 7 mm.
- Категорія ширини пластинок
- Категорія ширини пластинок: широке.
- Наявність коротких пластинок
- Наявність коротких пластинок: наявний.
Ніжка та основа
- Положення ніжки
- Положення ніжки: центральний.
- Форма ніжки
- Форма ніжки: циліндричний.
Форма ніжки: звужується догори.
Форма ніжки: булавоподібний. - Колір ніжки
- у верхній частині ніжки: Колір ніжки: білувате.
Колір ніжки: білий. - Рельєф поверхні ніжки
- у верхній частині ніжки: Рельєф поверхні ніжки: борознистий.
- Покрив поверхні ніжки
- Покрив поверхні ніжки: луската.
- Колір орнаментації ніжки
- Колір орнаментації ніжки: сіро-коричневий.
- Внутрішня будова ніжки
- Внутрішня будова ніжки: суцільний.
Внутрішня будова ніжки: порожнистий. - Довжина ніжки
- Довжина ніжки: 50–200 mm.
- Діаметр ніжки
- Діаметр ніжки: 5–20 mm.
- Піхва
- Піхва: наявний.
Піхва: наявний.
Піхва: наявний.
Піхва: наявний.
Піхва: наявний.
Кільце
- Наявність кільця
- Наявність кільця: без кільця.
Наявність кільця: без кільця.
Наявність кільця: без кільця.
Наявність кільця: без кільця.
Покривало біля основи
- Будова покривала біля основи ніжки
- Будова покривала біля основи ніжки: мішкоподібна.
Будова покривала біля основи ніжки: мішкоподібна.
Будова покривала біля основи ніжки: мішкоподібна.
- Забарвлення піхви та покривала в основі ніжки
- Забарвлення піхви та покривала в основі ніжки: білий (елемент покривала біля основи ніжки: вольва).
Забарвлення піхви та покривала в основі ніжки: білий (елемент покривала біля основи ніжки: вольва).
Забарвлення піхви та покривала в основі ніжки: білий (елемент покривала біля основи ніжки: вольва).
Забарвлення піхви та покривала в основі ніжки: білий (елемент покривала біля основи ніжки: вольва). - Кремезність ніжки
- Кремезність ніжки: кремезний.
- Матеріал піхви та покривала в основі ніжки
- Матеріал піхви та покривала в основі ніжки: перетинчастий (елемент покривала біля основи ніжки: вольва).
М'якуш
- Колір м’якуша
- Колір м’якуша: білий.
Колір м’якуша: білувате (м’якуш ніжки). - Смак м’якуша
- Смак м’якуша: терпкий.
Смак м’якуша: слабкий. - Стійкість м’якуша до перелому або розриву
- Стійкість м’якуша до перелому або розриву: крихкий.
- Тип консистенції м'якуша
- Тип консистенції м'якуша: м’ясистий (м’якуш шапинки).
- Колір м’якуша після пошкодження
- Колір м’якуша після пошкодження: без зміни кольору.
- Запах м’якуша
- Запах м’якуша: приємний (м’якуш).
Де і коли росте
- Оселище
- Оселище: хвойний ліс.
Оселище: мішаний ліс.
Оселище: листяний ліс. - Субстрат
- Субстрат: ґрунт.
Субстрат: підстилка. - Характер росту плодових тіл
- Характер росту плодових тіл: поодинці.
Характер росту плодових тіл: розсіяні групи.
Характер росту плодових тіл: невеликими групами. - Період плодоношення
- Плодові тіла з’являються з червня до вересня.
- Територія поширення
- Територія поширення: підтверджено.
Їстівність і кулінарія
- Їстівність
- Їстівний
- Необхідна обробка
- Потребує обробки
- Споживання в сирому вигляді
- У сирому вигляді отруйний
Право
- Охорона
- У Польщі вид не підлягає видовій охороні.
- Торгівля
- У Польщі вид не дозволено для торгівлі чи виробництва грибної продукції.
З чим можна сплутати
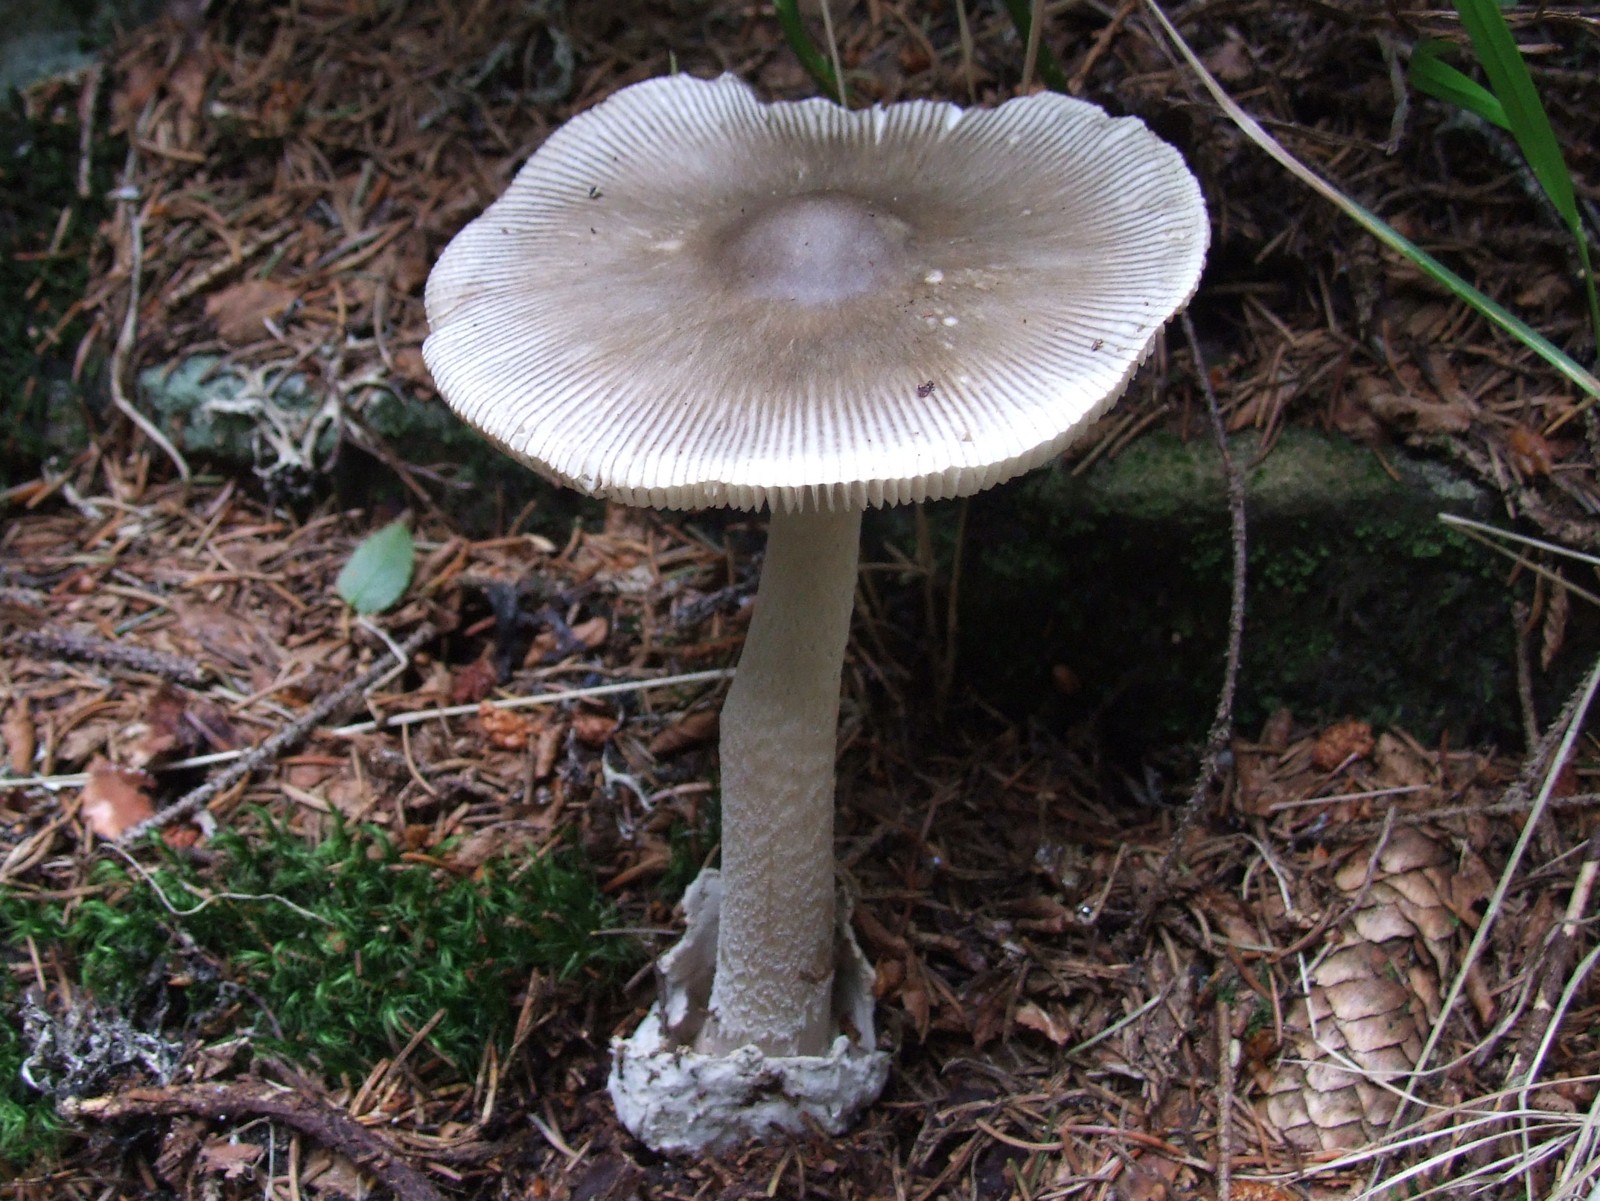
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Джерело фотографії · CC BY-SA 4.0Amanita vaginata
Найважливіші відмінності
Мухомор сірий (Amanita vaginata) відрізняється від мухомора оливкового шапинкою однорідного відтінку без концентричної зональності, а також гладенькою білою ніжкою, позбавленою темніших лусок.
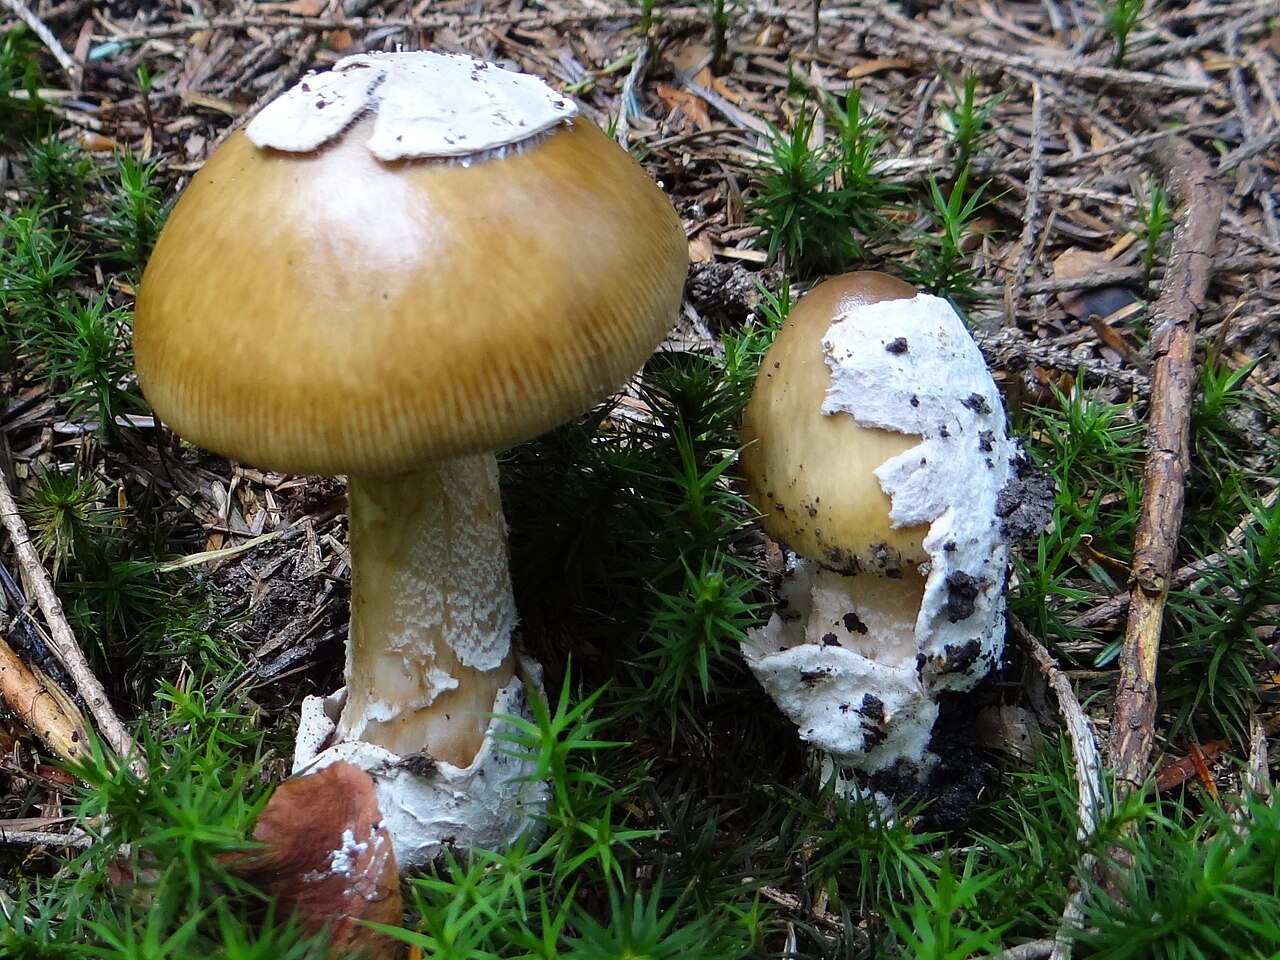
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Джерело фотографії · CC BY-SA 3.0Amanita submembranacea
Найважливіші відмінності
Мухомор бронзово-оливковий (Amanita submembranacea) утворює шапинки, частіше вкриті великими клаптями покривала, а його піхва біля основи ніжки виразно сіріє з внутрішнього боку.
Amanita fulva
Найважливіші відмінності
Мухомор іржаво-коричневий (Amanita fulva) відрізняється теплим, палево-помаранчевим або лисячо-коричневим забарвленням шапинки, білими пластинками з незмінним краєм та гладенькою ніжкою.
FAQ
Чи можна їсти Amanita battarrae у сирому вигляді?
Ні, у сирому вигляді гриб спричиняє шлунково-кишкові отруєння через наявність нестійких до температури токсинів.
Чи утворює цей вид кільце на ніжці?
Ні, як і більшість представників секції поплавків, Amanita battarrae не має залишків часткового покривала у вигляді кільця.
Яке дерево є головним партнером гриба?
Гриб утворює мікоризу з багатьма породами, але найчастіше з ялиною, сосною, ялицею, буком та дубом.
У які місяці найчастіше росте цей гриб?
Період плодоношення зазвичай починається в липні й триває до середини чи кінця жовтня.
Який смак має приготований гриб?
М'якоть має м'який, солодкуватий грибний смак із делікатним горіховим відтінком після відварювання.
На честь кого названий цей вид?
Вид отримав видову назву на честь італійського міколога та природодослідника Джованні Антоніо Баттарри.
Де найчастіше трапляється вид в Україні?
Він трапляється в лісових масивах Карпат, Прикарпаття, Полісся та лісостепових хвойно-широколистяних лісах.
Чи застосовується гриб у текстильному фарбуванні?
Іноді його використовують аматори для отримання природних бежевих і сіро-оливкових тонів натуральної вовни.
Яка головна риса шапки Amanita battarrae?
Шапка має радіально-смугастий край і характерну темнішу зону навколо центру.
Чи безпечний гриб після термічної обробки?
Після ретельного відварювання зі зливанням відвару токсичні термолабільні сполуки повністю руйнуються.
Любитель
Назви та історія
- Obowiązująca nazwa taksonomiczna
- Amanita battarrae
- Pozostałe nazwy
- muchomor wielkopochwowy
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: білий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: кулястий. Форма спори: кулястий. Форма спори: кулястий. Форма спори: кулястий. Форма спори: майже кулястий. Форма спори: еліпсоїдний (широкий). Форма спори: кулястий (майже). Форма спори: еліпсоїдний (широкий). Форма спори: еліпсоїдний (зрідка). Форма спори: кулястий (зрідка).
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький. Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 9–17,7 µm, ширина 7,2–15,6 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Дослід із фенолом
- Матеріал
- М'якуш плодового тіла
- Реактив
- фенол
- Виконання
- В описаній пробі застосовано фенол до вказаного матеріалу.
- Умови та прогалини в джерелах
У джерелі не вказано: підготовки зразка, концентрації фенолу, кількості реактиву, температури, часу зчитування, детального способу нанесення реактиву.
Спостереження / результат
- Результат у джерелі
- У м'якуші після застосування фенолу отримано барву, описану в джерелі як «фіолетова».
- Результат у джерелі
- У м'якуші після застосування фенолу отримано барву, описану в джерелі як «винно-червоно-коричнева».
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
- Листяні дерева в оточенні
- Листяні дерева в оточенні: береза.
Листяні дерева в оточенні: дуб.
Листяні дерева в оточенні: бук.
Листяні дерева в оточенні: граб.
Листяні дерева в оточенні: липа. - Хвойні дерева в оточенні
- Хвойні дерева в оточенні: ялина.
Хвойні дерева в оточенні: ялиця.
Хвойні дерева в оточенні: сосна. - Тип живлення
- Тип живлення: ектомікоризний.
Некулінарні застосування
Історично вид не мав промислового чи ремісничого застосування й не використовувався як самостійний технічний матеріал.
- Природні барвники: у практиках кустарного фарбування вовни та шовку зрілі плодові тіла іноді використовували для отримання тьмяних бежевих, блідо-оливкових і сірувато-жовтих відтінків текстильних волокон.
- Освітнє значення: традиційно виступає важливим наочним матеріалом у навчальних ботанічних колекціях, гербаріях та мікологічних експозиціях для демонстрації структури піхви й різноманіття секції Vaginatae.
- Етнографічні спостереження: задокументовані випадки використання старих сухих шапок у дитячих пастуших іграх як імітації монет або парасольок.
Історія та культура
Вид названий на честь видатного італійського міколога й натураліста XVIII століття Джованні Антоніо Баттарри, який зробив вагомий внесок у дослідження мікобіоти Апеннінського півострова. Перші згадки про цей таксон містяться в класичних європейських ботанічних працях XIX століття.
- Фольклорний контекст: у традиційній культурі багатьох народів Європи поплавки не виокремлювали індивідуально, а зараховували до загальної групи «безкільцевих мухоморів».
- Символіка: через контрастне двоколірне забарвлення шапки з чітко окресленою зоною у деяких регіональних оповідях гриб асоціювався із мінливістю та захисною мімікрією природи.
- Документовані записи: у мікологічних щоденниках Центральної Європи його часто фіксували як типового представника гірської мікофлори.
Їстівність і безпека
Вид вважається умовно-їстівним після ретельної підготовки. У сирому вигляді плодове тіло містить термолабільні гемолітичні сполуки, здатні викликати гострі шлунково-кишкові розлади, нудоту та нездужання.
- Термічна обробка: споживання можливе лише після тривалого відварювання зі зливанням відвару, що повністю знешкоджує термочутливі токсини.
- Кулінарні якості: м'якоть після відварювання має ніжну консистенцію, делікатний горіхово-грибний присмак і солодкуватий посмак.
- Традиції споживання: у кулінарних традиціях Італії, Франції та деяких країн Центральної Європи плодове тіло вважається якісним столовим грибом, хоча через підвищену крихкість його використання залишається локальним і потребує обережного поводження.
Оселище та поширення
Amanita battarrae трапляється у хвойних, мішаних і листяних лісах помірної кліматичної зони Європи та сусідніх регіонів. Основним субстратом для росту слугує кислий, дренований або помірно зволожений ґрунт із шаром рослинного опаду.
- Мікоризні партнери: утворює стійкий симбіоз із ялиною звичайною, сосною лісовою, ялицею, а також із буком лісовим, дубом і березою.
- Гірські оселища: часто росте на височинах, у передгірських і гірських масивах Карпат, Альп та інших гірських пасом Центральної й Південної Європи.
- Сезон вегетації: активне плодоношення триває із середини літа до кінця жовтня.
- Регіональні особливості: у північних широтах гриб частіше заселяє вологі соснові та ялинові бори, тоді як у південних районах поширений переважно в гірських дібровах та бучинах.
Джерела
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Оцінка атласу в чеському широкому розумінні A.battarrae/umbrinolutea; не результат харчового експерименту.
- Споживання в сирому вигляді
- Отруйний
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; зірочка означає авторську вказівку на гемолізини. Оцінка вторинного опрацювання, без ідентифікованого видового дослідження складу.
- Їстівність
- Отруйний
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; зірочка означає авторську вказівку на гемолізини. Оцінка вторинного опрацювання, без ідентифікованого видового дослідження складу.
- Необхідна обробка
- Потребує обробки
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Джерельна потреба обробки, без невказаного часу, температури або гарантії безпеки.
Наукові назви та таксономія
- Чинна наукова назва
Amanita battarrae
Наукові назви та таксономія
Правильна наукова назва таксона — Amanita battarrae (Boud.) Bon, класифікована в ранзі виду в межах родини мухоморових (Amanitaceae). Вона була утворена на основі базоніма Amanitopsis battarrae Boud. 1902 року.
Наукові назви та таксономія
Сучасна філогенетична ревізія секції Vaginatae, проведена командою Варги 2024 року, розділила Amanita battarrae та Amanita umbrinolutea як два незалежні види. У цьому трактуванні назви Amanita pachyvolvata та Amanita magnivolvata визнано синонімами A. battarrae.
Наукові назви та таксономія
Ревізія історичних гербарних зборів у Центральній Європі показала, що значна частина давніших колекцій, визначених як A. battarrae, насправді представляла A. umbrinolutea, тоді як матеріали, описані під назвою A. pachyvolvata, являли собою суміш таксонів, що включала серед іншого A. battarrae, A. spadicea і A. supravolvata.
Наукові назви та таксономія
Таксономічна історія виду охоплює послідовні зміни рангу: від трактування як різновиду через підняття до рангу виду Ріелем 1907 року до формальної комбінації в роді Amanita, опублікованої Марселем Боном 1985 року.
Матеріал і методи наукових досліджень
В анатомічних дослідженнях азійського матеріалу застосовували світлову мікроскопію в реактиві Мельцера та сканувальну електронну мікроскопію за збільшень від 3000× до 15000×.
Матеріал і методи наукових досліджень
Ревізія європейської секції Vaginatae 2024 року базувалася на секвенуванні чотирьох локусів ДНК (ITS, LSU, RPB1, TEF1-α) та мікроскопічному аналізі тканин піхви й розмірів спор у вибірках, що налічували по 30 вимірювань на екземпляр.
- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[18] [2] [19]
Екологія та поширення
- Мікоризні партнери
- Індія, імовірний мікоризний зв’язок за джерелом, немає документованого підтвердження мікоризи дослідженням коренів, обмежено спостереженням із джерела: Мікоризні партнери: Shorea robusta. [29]
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
- Довжина стеригми базидії
- Довжина стеригми базидії: до 8,2 µm. [29]
Довжина стеригми базидії: до 10 µm. [34] - Кількість спор на базидії
- Кількість спор на базидії становить 4. [17]
Кількість спор на базидії становить 1. [34]
Кількість спор на базидії становить 4. [21]
Кількість спор на базидії становить 2. [34]
Кількість спор на базидії становить 4. [34]
Кількість спор на базидії становить 2. [21]
Кількість спор на базидії становить 3. [34]
Гіменіальні цистиди
- Наявність цистид у гіменії
- Наявність цистид у гіменії: відсутній. [29]
Інші лабораторні ознаки
- Довжина клітини краю пластинки
- Довжина клітини краю пластинки: 10–60 µm. [21]
- Форма інших клітин леза пластинки
- Форма інших клітин леза пластинки: грушоподібні. [21]
- Ширина клітини краю пластинки
- Ширина клітини краю пластинки: 15–30 µm. [21]
- Фертильність краю пластинок
- Фертильність краю пластинок: стерильна. [21]
Фертильність краю пластинок: плідне. [29] - Наявність пілеоцистид
- Наявність пілеоцистид: відсутній. [29]
- Довжина клітини внутрішньої трами ніжки
- Довжина клітини внутрішньої трами ніжки: до 164 µm. [34]
- Ширина клітини внутрішньої трами ніжки
- Ширина клітини внутрішньої трами ніжки: до 47 µm. [34]
- Ширина гіфи внутрішньої трами ніжки
- Ширина гіфи внутрішньої трами ніжки: 3,2–12,5 µm. [34]
Ширина гіфи внутрішньої трами ніжки: до 32 µm. [29] - Ширина гіфи загального покривала
- Ширина гіфи загального покривала: 4–10 µm. [21]
Шкірка шапинки
- Розташування гіф шкірки шапинки
- Розташування гіф шкірки шапинки: переплетені. [34]
Розташування гіф шкірки шапинки: переплетені. [29] - Ширина елементів шкірки шапинки
- Ширина елементів шкірки шапинки: 1,8–8 µm. [34]
Ширина елементів шкірки шапинки: до 6,5 µm. [29] - Розгалуження гіфи шкірки
- Розгалуження гіфи шкірки: розгалужений. [34]
- Перегородки гіф шкірки
- Перегородки гіф шкірки: із перегородками. [29]
- Занурення гіф шкірки в драглисту речовину
- Занурення гіф шкірки в драглисту речовину: наявний. [29]
Спори
- Середнє відношення довжини спори до її ширини
- Середнє відношення довжини спори до її ширини: 1,2 (середнє значення). [21]
Середнє відношення довжини спори до її ширини: 1,19 (середнє значення). [34] - Наявність виросту рубчика базидіоспори
- Наявність виросту рубчика базидіоспори: наявний. [34]
Наявність виросту рубчика базидіоспори: наявний. [29] - Положення виростка рубчика базидіоспори
- Положення виростка рубчика базидіоспори: майже бічний. [34]
- Форма виростка рубчика базидіоспори
- Форма виростка рубчика базидіоспори: циліндричний. [34]
- Довжина відростка рубчика базидіоспори
- Довжина відростка рубчика базидіоспори: до 1,6 µm. [29]
- Колір спор під мікроскопом
- Колір спор під мікроскопом: гіаліновий. [34]
- Вміст спори
- Вміст спори: зерниста. [34]
- Краплі всередині спори
- Краплі всередині спори: наявний. [34]
- Довжина спори
- Довжина спори: 9–17,5 µm. [34]
Довжина спори: 10–14,5 µm. [21]
Довжина спори: 9–17,7 µm. [34]
Довжина спори: 10–12 µm. [17] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 1,03–1,52. [34]
Відношення довжини спори до її ширини: 1,03–1,5. [34]
Відношення довжини спори до її ширини: 1–1,1. [17] - Форма спори
- Форма спори: кулястий. [17]
Форма спори: кулястий. [11]
Форма спори: кулястий. [1]
Форма спори: кулястий. [15]
Форма спори: майже кулястий. [15]
Форма спори: еліпсоїдний (широкий). [21]
Форма спори: кулястий (майже). [34]
Форма спори: еліпсоїдний (широкий). [34]
Форма спори: еліпсоїдний (зрідка). [34]
Форма спори: кулястий (зрідка). [34] - Поверхня спори
- Поверхня спори: гладенький. [17]
Поверхня спори: гладенький. [11]
Поверхня спори: гладенький. [1]
Поверхня спори: гладенький. [34]
Трама гіменофора
- Тип трами гіменофора
- Тип трами гіменофора: білатеральна. [17]
Тип трами гіменофора: білатеральна. [34] - Ширина гіф трами
- Ширина гіф трами: 3,2–7,5 µm. [34]
- Довжина здутої клітини трами гіменофора
- Довжина здутої клітини трами гіменофора: до 65 µm. [34]
- Ширина здутої клітини трами гіменофора
- Ширина здутої клітини трами гіменофора: до 21 µm. [34]
Матеріал і методи досліджень
Проба з хімічним реактивом — матеріал та обмеження
Матеріал: М'якуш сухого зразка голотипу A.magnivolvata,Aalto 1600(H),Фінляндія.
Обсяг зчитування: Повний текст.
Обмеження: Концентрація 2%,сухий матеріал і 1–2-хвилинний час залишаються явно у вихідному методі; фазовий час кожного забарвлення не уточнено. Інтенсивність початкового фіолетового слабка; поточна модель має лише intense. Окремий кваліфікатор подано на розширення.
Мікроскопічні дані — джерело та обмеження
Матеріал: Tulloss 1994,дослідження типу Aalto 1600(H),40 спор із 1 плодового тіла та 1 колекції;Qсереднє 1.19,власний результат автора.
Обсяг зчитування: Повний текст.
Обмеження: Середнє є окремим результатом, а не межею виміру чи значенням для всіх популяцій.
Мікроскопічні дані — джерело та обмеження
Матеріал: Голотип Aalto 1600(H),значення середнього співвідношення довжини до ширини, наведене Aalto 1974.
Обсяг зчитування: Повний текст.
Обмеження: Середнє є окремим результатом, а не межею виміру чи значенням для всіх популяцій.
- Результати, наведені в джерелах — Кількість спор на базидії
- Liczba zarodników na jednej podstawce wynosi 3. [34]
Liczba zarodników na jednej podstawce wynosi 2. [34] [21]
Liczba zarodników na jednej podstawce wynosi 1. [34]
Liczba zarodników na jednej podstawce wynosi 4. [21] [34] [17] - Результати, наведені в джерелах — Довжина спори
- 10–14,5 µm [21]
9,8–15 µm (skrajnie 9–17,7 µm) [34]
10–12 µm [17]
10–16,5 µm (skrajnie 9–17,5 µm) [34] - Результати, наведені в джерелах — Відношення довжини спори до її ширини
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [17]
1,07–1,36 (skrajnie 1,03–1,5) [34]
1,06–1,36 (skrajnie 1,03–1,52) [34] - Результати, наведені в джерелах — Ширина спори
- 8,5–12,8 µm (skrajnie do 14,5 µm) [34]
9–12 µm [17]
8–11,5 µm [21]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [34] - Результати, наведені в джерелах — Ширина гіфи внутрішньої трами ніжки
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [34]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [17]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [34]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [34]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [34]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [34]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [34]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [34]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [34]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [34]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [34]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [34]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [17]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [17]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [17]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [17]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [17]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [17]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [17]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [17]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [17]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [17]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [17]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [17]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [17]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [17]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [17]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [17]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [17]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [17]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [17]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [21]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [21]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [21]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [21]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [21]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [21]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [21]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [21]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [34]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Назви та межі визначення виду
Польські назви: Wojewoda (2003, с.45) вживає назву muchomor oliwkowy для історичного A. battarae, відносячи до нього A. umbrinolutea. Snowarski документує також назву muchomor wielkopochwowy для A. magnivolvata. Остання має альтернативне значення в трактуванні синонімії Varga та співавторів (2024). Не переносилася назва muchomor dwubarwny: рекомендація PTMyk від 2025 р. закріплює її за A. umbrinolutea. У опрацьованій рекомендації не виявлено нової однозначної польської назви для вузько трактованого A. battarrae.
Наукова назва: Науковою назвою запису залишається Amanita battarrae (Boud.) Bon. Hanss і Moreau (2022) типіфікують базонім Amanitopsis vaginata var. battarrae Boud. (1902), вказуючи як лектотип таблицюV, рисунокC Battarra від 1755 р. та епітип JMH2021005 = LIP0004501. Публікація вказує збір з-під старого дуба у Vouhenans у Франції від 11 липня 2021 р. Епітип стабілізує значення назви, а не підтверджує тотожність усіх раніше визначених так екземплярів.
Сучасне трактування: Varga та співавтори (2024) поміщають епітип A. battarrae, голотип A. magnivolvata Aalto 1600 та епітип A. pachyvolvata AB11-08-56 в один клад. Вони визнають ці назви синонімами, а A. umbrinolutea за окремий вид. Їхні попередні угорські визначення battarrae виявилися umbrinolutea; під назвою pachyvolvata фігурувало кілька таксонів. Тому збережено окреме походження даних фінського типу, пізнішої європейської ревізії, польських історичних знахідок та індійського PUN 9144.
Фінський голотип: будова плодового тіла та піхви
Матеріал: Aalto (1974) описує три плодових тіла, зібрані 1 жовтня 1972 р. в Herniemi біля Puujärvi, Karjalohja, Фінляндія. Голотип має номер M.Aalto 1600(H). Шапинка мала 80–115 мм у діаметрі, ніжка 95–125×15–20 мм. Шапинка молодих екземплярів була куполоподібною, сірою зі слабким оливковим відтінком, сухою та блискучою, з 15-міліметровою рубчастою крайовою зоною. Авторка чітко зазначає, що не спостерігала повністю зрілих плодових тіл. Їм не приписували з цієї праці дорослої плоскої форми.
Покривало та зміни при висушуванні: Піхва була великою, мішкоподібною, повстистою, гладенькою з обох боків, свіжа — чисто-біла; близько 60 мм заввишки і 5–10 мм завтовшки. Після дотику з'являлися дрібні іржаво-жовті плями, які зберігалися після висушування. Піхва розтріскувалася на 2–3 лопаті 4–5 см над основою, не розпадаючись на лусочки на шапинці. Біля основи були дві виразні закруглені складки. Ці дані збережено в документації; їхні розміри не вносилися до розмірів кільця чи лусок. Під час висушування шапинка ставала шкірясто-коричневою, а серцевина суцільної ніжки просідала, залишаючи поперечні смуги. Це не вважалося станом середини свіжого плодового тіла.
Місцезростання: Плодові тіла росли на відстані 15–20 см одне від одного в затіненому листяному лісі з ліщиною, осикою, березою пухнастою та березою повислою; поблизу також була ялина. У підліску зазначено крушину, верби, вільху сіру та черемху. Субстратом був шар листя та гілочок над глиною. Це опис одного фінського місцезростання. Наявність ялини по сусідству не доводить її мікоризи з цим видом, а дата 1 жовтня не встановлює польського сезону.
Мікроскопія оригінального матеріалу Aalto
Спори та базидії: Aalto (1974) наводить спори широко ellipsoidні, неамілоїдні, довжиною 10–14,5 µm і шириною 8–11,5 µm. У записі 10,0–12,1–14,5×8,0–10,1–11,5 µm середні значення є середніми величинами, а не додатковими межами. Середнє співвідношення довжини і ширини становить 1,2. Базидії булавоподібні,50–75×20–25 µm, чотириспорові, також спостерігалися двоспорові. Це не замінювалося на діапазон 2–4, який дописував би не зазначене в цій праці значення 3.
Край пластинки та гіфи піхви: Стерильний край пластинок утворює виразна біла пластівчаста тканина. Її клітини грушоподібні,10–60×15–30 µm, з переважанням більших. Їх не називали автоматично хейлоцистидами. У піхві переважали довгі переплетені гіфи шириною 4–10 µm. Авторка не спостерігала пряжок у цьому описі піхви. Це результат „не спостережено”, що стосується конкретної тканини; не доказ відсутності пряжок у всьому плодовому тілі.
Дослідження типу та пізніша ревізія Туллосса
Доступ і матеріал: Прочитано повний авторський опис A. magnivolvata в Amanitaceae/Dikarya, з чітко розмежованими даними Туллосса (1994) та пізнішою ревізією. Оригінальну 92-сторінкову статтю в BHL не завантажено через HTTP403. Дані типу мають позначення[40/1/1]:40 спор з одного плодового тіла та однієї колекції. Загальна вибірка[140/6/4] охоплює 140 спор із шести плодових тіл і чотирьох колекцій. Їх не названо незалежними результатами для двох різних видів або двома незалежними популяціями типу.
Спори: Для типу вказано(9–)10–16,5(–17,5)×8,5–12,8(–14,5)µm, Q=(1,03–)1,07–1,36(–1,50), середнєQ=1,19. Для загальної вибірки:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6)µm, Q=(1,03–)1,06–1,36(–1,52). У базі збережено типові та крайні межі, а також відокремленість вибірок. Спори гладенькі, гіалінові, тонкостінні, неамілоїдні; від майже кулястих до широко еліпсоїдних, іноді еліпсоїдні або кулясті. Часто мають дещо сплощений адаксіальний профіль; гігантські спори бувають із цього боку увігнутими. Дзьобик сублатеральний, рідко латеральний, циліндричний. Краплі в спорах не були ідентифіковані як ліпіди.
Базидії та пряжки: Базидії голотипу мали 52–82×12,5–19 µm і незначно потовщені стінки до 0,5 µm. Близько 50% були двостеригмовими,25% чотиристеригмовими,25% одностеригмовими, рідко тристеригмовими; стеригми до 10×5 µm. У пізнішому зрілому матеріалі переважали чотири стеригми. Пряжки біля основ базидій були досить часті або часті в голотипі та рідші в зрілому матеріалі. Їхня наявність не суперечить результату Аалто для гіф піхви: вони стосуються іншої тканини й іншого зчитування. Частоту не переносили на інші варіанти.
Тканини: Гіфи шкірки шапинки мали 1,8–8 µm завширшки, розгалужувалися та були густо переплетені, з підрадіальним розташуванням. У зрілого дослідженого плодового тіла шкірка мала 30–70 µm і сильно желатинізувалася лише біля поверхні; у стадії пуп'янка близько 50 µm і без желатинізації. Трама пластинок була білатеральною; її гіфи 3,2–7,5 µm, із роздутими інтеркалярними ділянками до 65×21 µm. У м'якуші ніжки описано гіфи 3,2–12,5 µm та акрофізаліди до 164×47 µm, вузькобулавоподібні, зі стінкою біля верхівки 0,5–1 µm. Їх не сплутали з гіфами шкірки ніжки.
Шари покривала: У висушеному пуп'янку зовнішня поверхня покривала мала 90 µm завтовшки, з частково желатинізованими пучками гіф 2,5–12,8 µm. Всередині нього гіфи мали 2,8–12,2 µm, а роздуті кінцеві клітини — до 96×55 µm; біля основи зрілої ніжки клітини досягали 141×63 µm. У пізнішому матеріалі пластівці покривала на зрілій шапинці мали клітини до 127×100 µm. Різні поверхні, частини та стадії не об'єднували в один безумовний діапазон клітини всієї піхви. Оригінали та відсутні розмежування збережено в документації розширень.
Індійський PUN 9144: обсяг та обмеження даних
Матеріал і метод: Кумар та Атрі (2020) описують збір PUN 9144 Джітендера Кумара з Дхаулакуана в Гімачал-Прадеш, Індія,425 м н.р.м.,28 серпня 2013 р., по сусідству з Shorea robusta. Визначення ґрунтується на макро- та мікроскопії; молекулярної відповідності з епітипом Хансса та Моро не показано. У дослідженні збережено визначення авторів, без перенесення дати й екології на Польщу. Прочитано методи з першої сторінки, опис зі с.34 та рисунок 8 зі с.35; перевірка зображення сторінки відокремила цей опис від опису Russula nobilis, що завершується поруч.
Результати: Шкірка шапинки знімалася частково до половини; джерело не уточнює, чи йдеться про радіус, чи про площу. Наведений дріб записано без вигаданої основи. Спори 10–12×9–12 µm, Q=1–1,1, з дзьобиком до 1,6 µm; базидії 29–40×8–12 µm, чотириспорові, зі стеригмами до 8,2 µm і без пряжок. Край пластинки фертильний, цистиди відсутні. Гіфи шкірки шапинки переплетені, септовані, до 6,5 µm, у гелеподібній речовині; пілеоцистиди відсутні. М'якуш ніжки містив паралельні, гіалінові, септовані гіфи до 32 µm. Окреме джерело та матеріал збережено також там, де результат відрізняється від європейського типу.
Ймовірна мікориза: Автори відзначили органічне з'єднання міцелію з нижньої частини ніжки з корінням салу й охарактеризували цей зв'язок як імовірну ектомікоризу. У цій праці не проводилося молекулярне визначення коренів або інокуляційний дослід. Саму лише близькість рослин не замінювали достовірним мікоризним зв'язком або інструкцією з культивування.
Польща: поширення та строки плодоношення
Доступні дані: Чеклист Воєводи (2003, с.45) наводить червень–вересень та історичні місцезростання, зокрема в Цединському ландшафтному парку, на Хойніку, в Татрах, біля Міколайок і в заповіднику Старожин в Августовській пущі. Згадує ліси та бук. Місяці записано прямо як 6–9; сезон не виводили з дат окремих зборів у GRej чи із закордонного атласу.
Рівень підтвердження: У цьому чеклисті A. umbrinolutea є синонімом A. battarae. Отже, польські знахідки підтверджують уживання історичного широкого поняття. Їхня відповідність сучасному вузькому A. battarrae потребує ревізії зразків. PTMyk (2025) також підкреслює потребу верифікації кількості місцезростань за неоднорідного розуміння таксона. З цього не випливає доказ відсутності в Польщі. Сучасну частоту трапляння не вираховували з колишнього червоного списку R.
Джерельна реакція м'якуша на фенол
Хід тесту: Аалто (1974, с.94) досліджувала м'якуш сухого зразка за допомогою 2% розчину фенолу. Через 1–2 хвилин наставала реакція: спочатку слабкий фіолетовий, потім потемніння до винно-червоно-коричневого кольору. У базі є два впорядковані етапи одного тесту; їх не сплутали з природною зміною від натискання чи з неамілоїдністю спор. Концентрацію, сухий матеріал і діапазон часу збережено в описі методу. Час 1–2 хвилин не замінювали самовільно на точку 90 секунд.
Їстівність: перевірений ланцюг джерельних підстав
Оцінки авторів: Воєвода (2003) вказує в давньому широкому розумінні «Edible». Чеський атлас називає вид їстівним, а SFMU відносить A. battarrae до грибів, що потребують ретельного відварювання через гемолізини. First Nature не рекомендує збирати, вказуючи на недостатні знання про їстівність. Це думки та довідкові праці з різними межами визначення, а не чотири незалежні експерименти з безпеки.
Межа підтвердження: У зчитаних послідовностях не виявлено первинного визначення гемолізинів або контрольованого дослідження вживання матеріалу, відповідного епітипу A. battarrae. Звідси не підтверджено безпеку чи тривалість варіння у хвилинах. Відсутність знайденої праці не доводить нетоксичності, хибності оцінки атласу чи неіснування досліджень.
Верифікація поширення — обсяг та обмеження
Матеріал: Polska,historyczne konto czeklisty Wojewody 2003,s.45. Stanowiska:Cedynia,Chojnik,Tatry,okoliceMikołajek,rezerwatStarozyn.
Обсяг опрацювання: Повний текст.
Дата перегляду: 19.10.2026.
Обмеження: Підтверджено факт публікації польських знахідок під старою назвою. Це не доказ належності кожної колекції до вузького сучасного A.battarrae. Відсутність поширення не виводилася з таксономічної невизначеності.
Верифікація поширення — обсяг та обмеження
Матеріал: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A.battarae.
Обсяг опрацювання: Фрагменти джерел.
Опрацьовано фрагмент джерела; повний текст і методи не були верифіковані.
Дата перегляду: 21.10.2026.
Обмеження: Вихідне визначення та обсяг поняття збережено. Не декларувалося нового дослідження зразків чи опрацювання всіх публікацій, цитованих джерелом.
Обсяг опрацювання
Перед завершенням запис потребує доповнення або врегулювання.
- Пошук регіонів поширення вимагає розрахунку.
Правова основа та межі оцінки
Найважливіші речовини та їхня дія
Екологічні дослідження
Джерельна документація
Висновки джерела: У дослідженні Тервонен та співавторів (2019) Amanita battarrae опинилася в таблиці ектомікоризних грибів зі значеннями LC/0/1/1 у стовпчиках IUCN/Grazed/Aband/All. Досліджено 36 місцезростань у центральній Фінляндії: 18 випасаних і 18 покинутих, під час трьох візитів на трьох ділянках 10 × 10 м. Рядок фіксує трапляння в покинутій частині; не визначає національної частоти, конкретного дерева-господаря чи перевірки ДНК.
Оселище та поширення
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Плодоношення | Джерела |
|---|---|---|---|
| Польща | Сондецька улоговина | VI–IX |
|
Джерела
- First Nature, Pat O’Reilly, Amanita battarrae (także [26])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (także [22])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (także [32])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (także [30])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- Nr 26 — materiał, metoda i dokładny wynik źródła
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (także [35])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.