
Jedlý

Vyžaduje úpravu

Za syrova jedovatý

Nastavte polohu, abyste viděli údaje pro svůj region.


Muchomůrka Battarrova (Amanita battarrae) je bezprstenná plákavkovitá houba z čeledi muchomůrkovitých. Typická je šedohnědým kloboukem s výrazným pásováním a rýhovaným okrajem, pochvou na bázi třeně a křehkou dužninou. Roste v mykorhizním svazku s listnatými i jehličnatými stromy.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
- Výška plodnice
- Výška plodnice: 150 mm.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: vejčitý.
Tvar klobouku: zvoncovitý.
Tvar klobouku: vyklenutý.
u zralých plodnic: Tvar klobouku: plochý.
u mladých plodnic: Tvar klobouku: polokulovitý. - Reliéf povrchu klobouku
- Reliéf povrchu klobouku: hladký.
- Pokryv klobouku
- Pokryv klobouku: holá.
- Lesk povrchu klobouku
- Lesk povrchu klobouku: lesklý.
- Lepkavost a slizkost klobouku
- Lepkavost a slizkost klobouku: lepkavý.
- Barva klobouku
- Barva klobouku: šedý.
Barva klobouku: šedohnědý.
Barva klobouku: žlutoolivový. - Obrys okraje klobouku
- Obrys okraje klobouku: rovný.
- Reliéf povrchu okraje klobouku
- Reliéf povrchu okraje klobouku: brázditý.
- Praskliny a trhliny okraje
- Praskliny a trhliny okraje: bez prasklin.
- Průměr klobouku
- Průměr klobouku je 40–120 mm.
- Střed klobouku
- Střed klobouku: s výrazným hrbolem.
Střed klobouku: s výrazným hrbolem.
Střed klobouku: Vmáčklý. - Slupitelnost pokožky klobouku
- Slupitelnost pokožky klobouku: částečně slupitelná.
Slupitelnost pokožky klobouku: částečně slupitelná (do poloviny). - Přítomnost zbytků plachetky na klobouku
- Přítomnost zbytků plachetky na klobouku: nepřítomný.
- Barevné zónování klobouku
- Barevné zónování klobouku: soustředný (zřetelné zóny).
Barevné zónování klobouku: soustředný.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: lupeny.
Lupeny u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: volný od třeně (lupeny).
Připojení hymenoforu ke třeni: přirostlý k třeni (lupeny).
Připojení hymenoforu ke třeni: volný od třeně (lupeny).
Připojení hymenoforu ke třeni: přirostlý k třeni (lupeny).
Připojení hymenoforu ke třeni: volný od třeně (lupeny).
- Barva hymenoforu
- Barva hymenoforu: krémový.
Barva hymenoforu: bělavá.
Barva hymenoforu: krémově bílý.
Barva hymenoforu: bílý. - Makroskopická stavba volného ostří lupenů
- Makroskopická stavba volného ostří lupenů: celokrajné s hladkým obrysem.
Makroskopická stavba volného ostří lupenů: vločkovité.
u mladých plodnic: Makroskopická stavba volného ostří lupenů: vločkovité.
u starých plodnic: Makroskopická stavba volného ostří lupenů: zoubkaté nebo pilovité. - Přirozená barva ostří lupene
- Přirozená barva ostří lupene: bílý.
- Rozestup lupenů
- Rozestup lupenů: blízko u sebe.
Rozestup lupenů: řídce uspořádané.
Rozestup lupenů: dosti řídké.
Rozestup lupenů: blízko u sebe.
Rozestup lupenů: hustě uspořádané. - Tloušťka lupenů
- Tloušťka lupenů: tlustý.
- Výška lupenů
- Výška lupenů: do 7 mm.
- Šířková třída lupenů
- Šířková třída lupenů: široké.
- Přítomnost krátkých lupenů
- Přítomnost krátkých lupenů: přítomný.
Třeň a báze
- Poloha třeně
- Poloha třeně: středový.
- Tvar třeně
- Tvar třeně: válcovitý.
Tvar třeně: zužující se vzhůru.
Tvar třeně: kyjovitý. - Barva třeně
- v horní části třeně: Barva třeně: bělavá.
Barva třeně: bílý. - Reliéf povrchu třeně
- v horní části třeně: Reliéf povrchu třeně: brázditý.
- Pokryv povrchu třeně
- Pokryv povrchu třeně: šupinatá.
- Barva ornamentace třeně
- Barva ornamentace třeně: šedohnědý.
- Vnitřek třeně
- Vnitřek třeně: plný.
Vnitřek třeně: dutý. - Délka třeně
- Délka třeně: 50–200 mm.
- Průměr třeně
- Průměr třeně: 5–20 mm.
- Pochva
- Pochva: přítomný.
Pochva: přítomný.
Pochva: přítomný.
Pochva: přítomný.
Pochva: přítomný.
Prsten
- Přítomnost prstenu
- Přítomnost prstenu: bez prstenu.
Přítomnost prstenu: bez prstenu.
Přítomnost prstenu: bez prstenu.
Přítomnost prstenu: bez prstenu.
Plachetka na bázi
- Stavba vela u báze třeně
- Stavba vela u báze třeně: vakovitá.
Stavba vela u báze třeně: vakovitá.
Stavba vela u báze třeně: vakovitá.
- Barva pochvy a plachetky na bázi třeně
- Barva pochvy a plachetky na bázi třeně: bílý (část vela u báze třeně: pochva).
Barva pochvy a plachetky na bázi třeně: bílý (část vela u báze třeně: pochva).
Barva pochvy a plachetky na bázi třeně: bílý (část vela u báze třeně: pochva).
Barva pochvy a plachetky na bázi třeně: bílý (část vela u báze třeně: pochva). - Zavalitost třeně
- Zavalitost třeně: statný.
- Materiál pochvy a plachetky na bázi třeně
- Materiál pochvy a plachetky na bázi třeně: blanitý (část vela u báze třeně: pochva).
Dužnina
- Barva dužniny
- Barva dužniny: bílý.
Barva dužniny: bělavá (dužnina třeně). - Chuť dužniny
- Chuť dužniny: svíravý.
Chuť dužniny: slabý. - Odolnost dužniny proti zlomení nebo roztržení
- Odolnost dužniny proti zlomení nebo roztržení: křehký.
- Typ konzistence dužniny
- Typ konzistence dužniny: masitý (dužnina klobouku).
- Barva dužniny po poranění
- Barva dužniny po poranění: beze změny barvy.
- Vůně dužniny
- Vůně dužniny: příjemný (dužnina).
Kde a kdy roste
- Stanoviště
- Stanoviště: jehličnatý les.
Stanoviště: smíšený les.
Stanoviště: listnatý les. - Substrát
- Substrát: půda.
Substrát: opad. - Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: roztroušené skupiny.
Způsob růstu plodnic: v malých skupinách. - Doba růstu
- Plodnice se objevují od června do září.
- Oblast výskytu
- Oblast výskytu: potvrzený.
Jedlost a kuchyně
- Jedlost
- Jedlý
- Nutná úprava
- Vyžaduje úpravu
- Konzumace za syrova
- Za syrova jedovatý
Právo
- Ochrana
- V Polsku nepodléhá druhové ochraně.
- Prodej
- V Polsku není povolen k prodeji ani k výrobě houbových výrobků.
Možná záměna
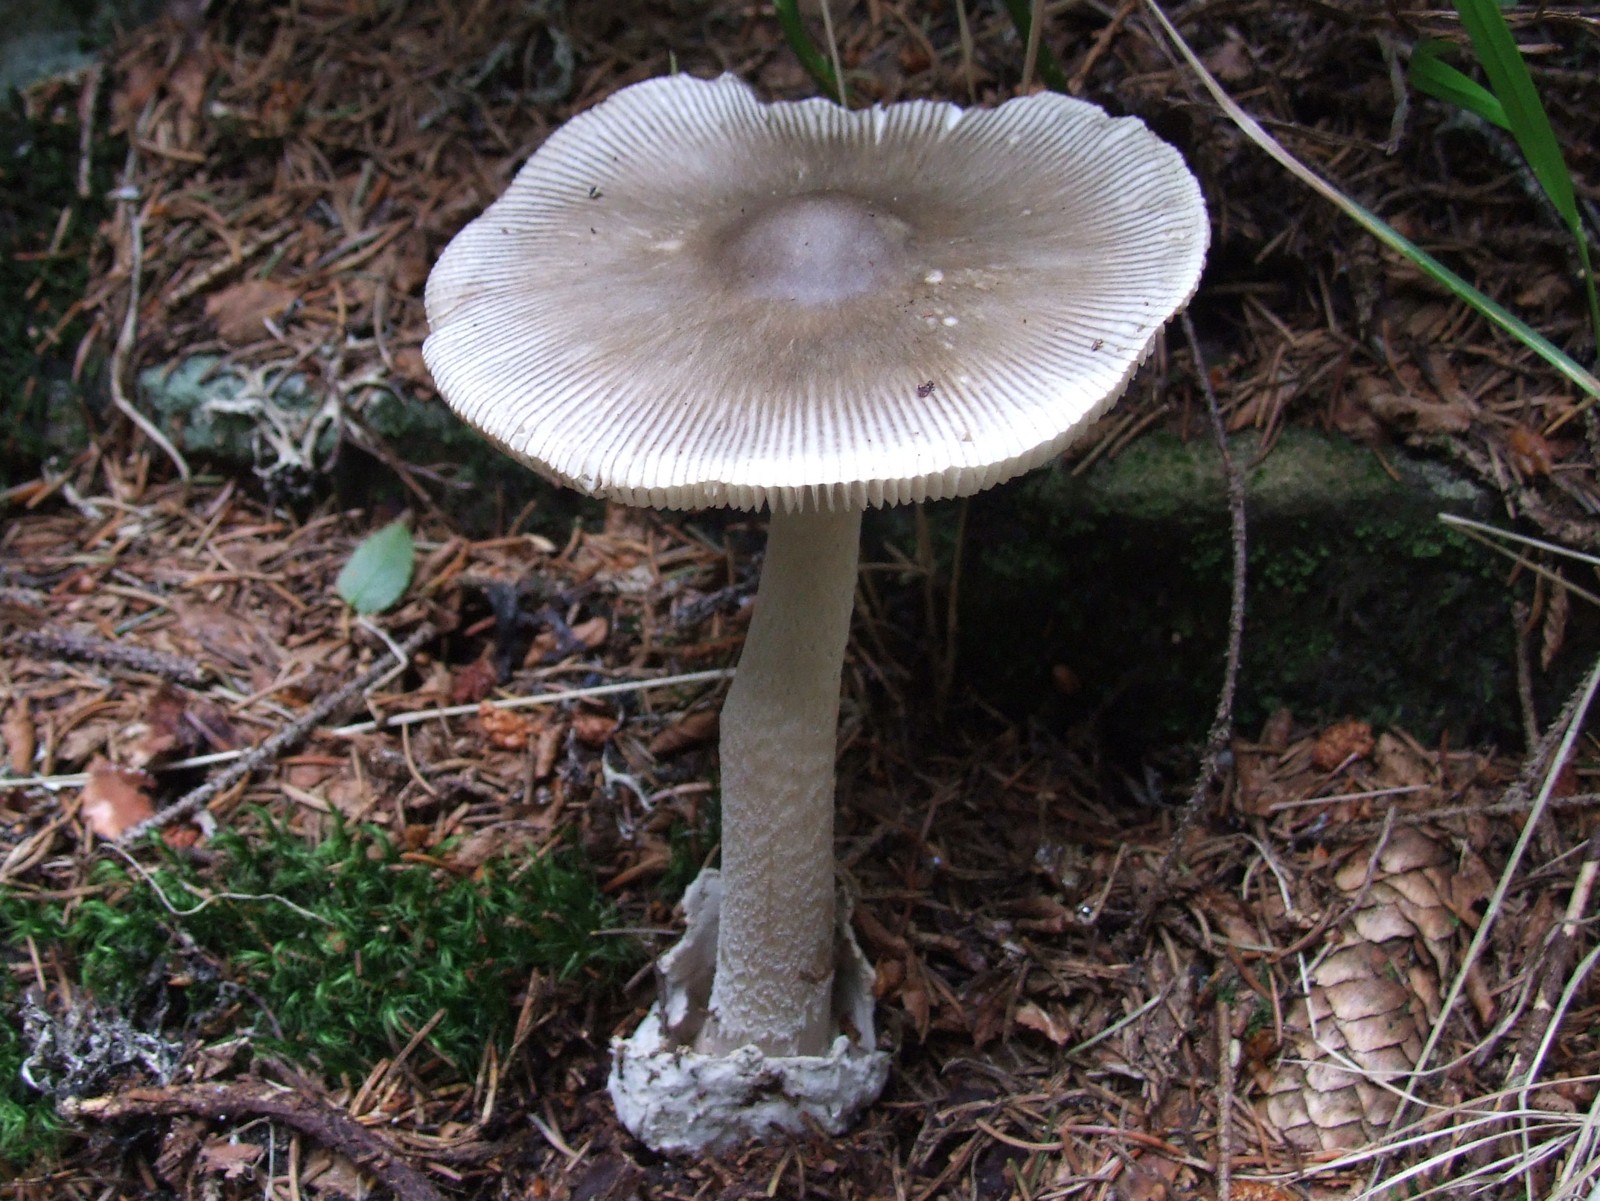
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
Zdroj fotografie · CC BY-SA 4.0Amanita vaginata
Hlavní rozdíly
Muchomůrka šedivka (Amanita vaginata) se liší od muchomůrky olivové kloboukem s jednotným odstínem bez soustředného pásování a hladkým, bílým třeněm bez tmavších šupin.
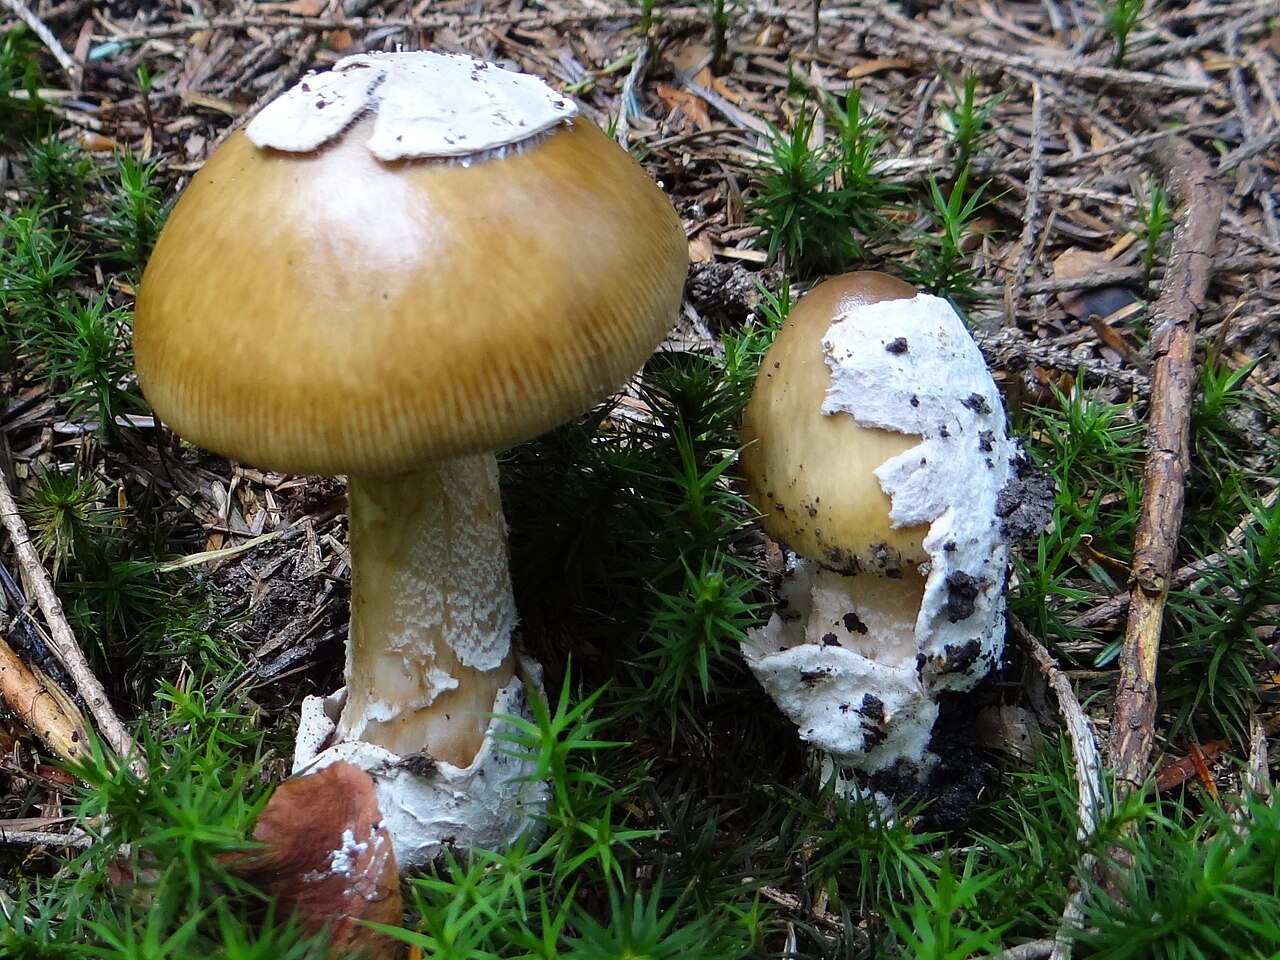
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
Zdroj fotografie · CC BY-SA 3.0Amanita submembranacea
Hlavní rozdíly
Muchomůrka hnědoolivová (Amanita submembranacea) tvoří klobouky častěji pokryté velkými pláty plachetky a její pochva na bázi třeně z vnitřní strany zřetelně šedne.
Amanita fulva
Hlavní rozdíly
Muchomůrka plavá (Amanita fulva) se liší teplým, plavě oranžovým nebo liškově hnědým zbarvením klobouku, bílými lupeny s neměnným ostřím a hladkým třeněm.
FAQ
Kdy se muchomůrka Battarrova objevuje v lesích nejčastěji?
Hlavní období růstu nastává od července do října, přičemž nejvíce plodnic vyrůstá během srpna a září po deštích.
S jakými stromy tvoří tento druh symbiózu?
Mykorhizu vytváří především se smrky, buky, duby a v chladnějších oblastech také s břízami.
Na jakých půdách ji lze nejčastěji najít?
Vyhledává kyselé až mírně zásadité hlinitopísčité půdy v podhorských a horských lesích.
Lze muchomůrku Battarrovu jíst za syrova?
Nikoli, v syrovém stavu obsahuje termolabilní toxiny vyvolávající žaludeční potíže.
Jak dlouho se musí tepelně upravovat?
Nezbytná je tepelná úprava trvající alespoň dvacet minut varu nebo důkladného dušení.
Jaká je chuť její dužniny po úpravě?
Dužnina má jemnou, nenápadnou až mírně nasládlou chuť bez výraznějšího aromatu.
Sbírá se tento druh běžně v zahraničí?
Místní oblibě se těší v některých regionech Itálie a Francie, jinde bývá opomíjena.
Po kom získala tato houba své druhové jméno?
Pojmenována je po italském mykologovi Giovannim Antoniu Battarrovi z osmnáctého století.
Využívá se tento druh k barvení tkanin?
Ne, dužnina neobsahuje pigmenty vhodné k barvení a rychle se rozkládá.
Používala se houba v lidovém léčitelství?
V lidovém léčitelství ani k ošetřování ran nebyla historicky nikdy využívána.
Nadšenec
Názvy a historie
- Platné vědecké jméno
- Amanita battarrae
- Další jména
- muchomor wielkopochwowy
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách zvedněte klobouk a prohlédněte si nános.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: bílý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: kulovitý. Tvar výtrusu: téměř kulovitý. Tvar výtrusu: elipsoidní (široký). Tvar výtrusu: kulovitý (téměř). Tvar výtrusu: elipsoidní (široký). Tvar výtrusu: elipsoidní (příležitostně). Tvar výtrusu: kulovitý (příležitostně).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 9–17,7 µm, šířka 7,2–15,6 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Test s fenolem
- Materiál
- Dužnina plodnice
- Činidlo
- fenol
- Provedení
- V popsaném testu byl na uvedený materiál aplikován fenol.
- Podmínky a nedostatky zdrojů
Ve zdroji není uvedeno: příprava vzorku, koncentrace fenolu, množství činidla, teplota, doba odečtu, podrobný způsob nanesení činidla.
Pozorování / výsledek
- Výsledek ze zdroje
- V dužnině byla po použití fenolu získána barva popsaná ve zdroji jako „fialová“.
- Výsledek ze zdroje
- V dužnině byla po použití fenolu získána barva popsaná ve zdroji jako „vínově červenohnědá“.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
- Listnaté stromy v okolí
- Listnaté stromy v okolí: bříza.
Listnaté stromy v okolí: dub.
Listnaté stromy v okolí: buk.
Listnaté stromy v okolí: habr.
Listnaté stromy v okolí: lípa. - Jehličnaté stromy v okolí
- Jehličnaté stromy v okolí: smrk.
Jehličnaté stromy v okolí: jedle.
Jehličnaté stromy v okolí: borovice. - Způsob výživy
- Způsob výživy: ektomykorhizní.
Mimokulinární využití
Muchomůrka Battarrova nemá žádné tradiční ani moderní praktické využití mimo oblast mykologického výzkumu a taxonomické osvěty. V lidovém léčitelství, tradičním koželužství či textilním barvířství tento druh nikdy nehrál žádnou roli, neboť neobsahuje trvanlivá barviva schopná fixace na vlně či plátně a jeho křehká dužnina podléhá rychlému samovolnému rozpadu. Ojediněle se objevuje jako demonstrační materiál na mykologických výstavách a v osvětových expozicích, kde slouží k seznámení veřejnosti s variabilitou bezprstenných zástupců. Pro rituální, kosmetické, dezinfekční či technické účely nebyla tato houba v historických pramenech ani v etnografických záznamech zaznamenána.
Historie a kultura
Druh byl vědecky popsán na počátku dvacátého století a nese jméno významného italského přírodovědce a mykologa Giovanniho Antonia Battarry, který detailně dokumentoval flóru a houby Apeninského poloostrova v osmnáctém století. V lidových tradicích střední a západní Evropy tento zástupce sekce Vaginatae nesplýval s konkrétními mýty ani rituály, ale patřil do široké skupiny lidově nazývané plavounky či panenky. V písemných pramenech a venkovském folklóru byly bezprstenné druhy často spojovány s lesní samotou a pomíjivostí pro svou křehkou stavbu. Venkovská kultura románských zemí vnímala rodinnou tradici sběru těchto zástupců jako součást drobných lokálních zvyklostí, které se předávaly ústně mezi generacemi v podhorských oblastech.
Jedlost a bezpečnost
Tento druh je po důkladné a dostatečně dlouhé tepelné úpravě považován za jedlý, avšak v syrovém či nedostatečně provařeném stavu je mírně jedovatý. Obsahuje termolabilní toxiny, které způsobují podráždění zažívacího traktu provázené nevolností a žaludečními křečemi. Bezpečná konzumace vyžaduje minimálně dvacet minut varu nebo dušení, přičemž vodu z předvaření se doporučuje vylít. Chuť dužniny je jemná, nevýrazná až nasládlá, bez specifického zápachu. Kulinářská obliba se v různých zemích znatelně liší: ve střední Evropě ji praktičtí houbaři spíše opomíjejí, zatímco v některých oblastech Itálie, Francie a východní Evropy bývá místně zařazována do běžné venkovské kuchyně. Křehkost plodnic a nízká vydatnost dužniny z ní však činí spíše příležitostnou jedlou houbu pro poučené zájemce.
Stanoviště a výskyt
Muchomůrka Battarrova se vyskytuje ve smíšených, jehličnatých i listnatých lesích mírného pásma Evropy a přilehlých asijských regionů. Preferuje kyselé až mírně vápnité podloží, často na hlinitopísčitých půdách v podhorských a horských polohách, méně často v nížinných oblastech. Mykorhizní symbiózu vytváří především se smrkem ztepilým, bukem lesním, dubem letním i zimním a v boreálních polohách také s břízami. Hlavní růstové období trvá od července do října, přičemž vrchol fructifikace nastává po vydatných pozdně letních deštích v srpnu a září. V jižní a jihozápadní Evropě bývá sezóna posunuta do teplého podzimu až počátku listopadu, zatímco ve Skandinávii a vyšších horských polohách střední Evropy končí již s prvními zářijovými přízemními mrazíky. Rozšíření je poměrně široké, avšak lokální a nerovnoměrné.
Zdroje
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Hodnocení v atlasu v českém širokém pojetí A.battarrae/umbrinolutea; nikoli výsledek stravovacího pokusu.
- Konzumace za syrova
- Jedovatý
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; hvězdička označuje autorské uvedení hemolyzinů. Hodnocení sekundárního zpracování,bez identifikovaného druhového rozboru složení.
- Jedlost
- Jedovatý
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; hvězdička označuje autorské uvedení hemolyzinů. Hodnocení sekundárního zpracování,bez identifikovaného druhového rozboru složení.
- Nutná úprava
- Vyžaduje úpravu
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Zdrojová potřeba úpravy,bez neuvedené doby,teploty nebo záruky bezpečnosti.
Vědecké názvy a taxonomie
- Platné vědecké jméno
Amanita battarrae
Vědecké názvy a taxonomie
Platné vědecké jméno taxonu je Amanita battarrae (Boud.) Bon, klasifikované v ranku druhu v rámci čeledi muchomůrkovitých (Amanitaceae). Bylo vytvořeno na základě bazyonymu Amanitopsis battarrae Boud. z roku 1902.
Vědecké názvy a taxonomie
Moderní fylogenetická revize sekce Vaginatae provedená týmem Vargy v roce 2024 oddělila Amanita battarrae a Amanita umbrinolutea jako dva nezávislé druhy. V tomto pojetí byla jména Amanita pachyvolvata a Amanita magnivolvata uznána za synonyma A. battarrae.
Vědecké názvy a taxonomie
Revize historických herbářových sbírek ve střední Evropě ukázala, že značná část dřívějších položek určovaných jako A. battarrae ve skutečnosti představovala A. umbrinolutea, zatímco materiály popisované pod jménem A. pachyvolvata představovaly směs taxonů zahrnující mj. A. battarrae, A. spadicea a A. supravolvata.
Vědecké názvy a taxonomie
Taxonomická historie druhu zahrnuje postupné změny taxonomické kategorie: od pojetí na úrovni variety přes povýšení na druh Rielem v roce 1907 až po formální kombinaci v rodu Amanita publikovanou Marcelem Bonem v roce 1985.
Materiál a metody vědeckého výzkumu
V anatomických studiích asijského materiálu byla použita světelná mikroskopie v Melzerově činidle a skenovací elektronová mikroskopie při zvětšeních od 3000× do 15000×.
Materiál a metody vědeckého výzkumu
Revize evropské sekce Vaginatae z roku 2024 byla založena na sekvenování čtyř lokusů DNA (ITS, LSU, RPB1, TEF1-α) a mikroskopické analýze pletiv pochvy a rozměrů výtrusů ve vzorcích čítajících po 30 měřeních na položku.
- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[18] [2] [19]
Ekologie a rozšíření
- Mykorhizní partneři
- Indie, předpokládaná mykorhizní vazba podle zdroje, bez doloženého potvrzení mykorhizy vyšetřením kořenů, omezeno na pozorování ze zdroje: Mykorhizní partneři: shorea silná. [29]
Laboratorní diagnostika
Strukturované údaje
Bazidie
- Délka sterigmatu bazidie
- Délka sterigmatu bazidie: do 8,2 µm. [29]
Délka sterigmatu bazidie: do 10 µm. [34] - Počet výtrusů na bazidii
- Počet výtrusů na bazidii je 4. [17]
Počet výtrusů na bazidii je 1. [34]
Počet výtrusů na bazidii je 4. [21]
Počet výtrusů na bazidii je 2. [34]
Počet výtrusů na bazidii je 4. [34]
Počet výtrusů na bazidii je 2. [21]
Počet výtrusů na bazidii je 3. [34]
Hymeniální cystidy
- Přítomnost cystid v hymeniu
- Přítomnost cystid v hymeniu: nepřítomný. [29]
Ostatní laboratorní znaky
- Délka buňky ostří lupene
- Délka buňky ostří lupene: 10–60 µm. [21]
- Tvar ostatních buněk ostří lupene
- Tvar ostatních buněk ostří lupene: hruškovité. [21]
- Šířka buňky ostří lupene
- Šířka buňky ostří lupene: 15–30 µm. [21]
- Přítomnost pileocystid
- Přítomnost pileocystid: nepřítomný. [29]
- Délka buňky vnitřní tramy třeně
- Délka buňky vnitřní tramy třeně: do 164 µm. [34]
- Šířka buňky vnitřní tramy třeně
- Šířka buňky vnitřní tramy třeně: do 47 µm. [34]
- Šířka hyfy vnitřní tramy třeně
- Šířka hyfy vnitřní tramy třeně: 3,2–12,5 µm. [34]
Šířka hyfy vnitřní tramy třeně: do 32 µm. [29] - Šířka hyfy celkové plachetky
- Šířka hyfy celkové plachetky: 4–10 µm. [21]
Pokožka klobouku
- Uspořádání hyf pokožky klobouku
- Uspořádání hyf pokožky klobouku: propletené. [34]
Uspořádání hyf pokožky klobouku: propletené. [29] - Šířka prvků pokožky klobouku
- Šířka prvků pokožky klobouku: 1,8–8 µm. [34]
Šířka prvků pokožky klobouku: do 6,5 µm. [29] - Větvení hyfy pokožky
- Větvení hyfy pokožky: větvený. [34]
- Přepážky hyf pokožky
- Přepážky hyf pokožky: přehrádkovaný. [29]
- Uložení hyf pokožky v želatinózní substanci
- Uložení hyf pokožky v želatinózní substanci: přítomný. [29]
Výtrusy
- Průměrný poměr délky a šířky výtrusu
- Průměrný poměr délky a šířky výtrusu: 1,2 (průměr). [21]
Průměrný poměr délky a šířky výtrusu: 1,19 (průměr). [34] - Přítomnost apikulu bazidiospory
- Přítomnost apikulu bazidiospory: přítomný. [34]
Přítomnost apikulu bazidiospory: přítomný. [29] - Poloha hilárního výběžku bazidiospory
- Poloha hilárního výběžku bazidiospory: téměř boční. [34]
- Tvar apikulu bazidiospory
- Tvar apikulu bazidiospory: válcovitý. [34]
- Délka apikálního výběžku bazidiospory
- Délka apikálního výběžku bazidiospory: do 1,6 µm. [29]
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: hyalinní. [34]
- Obsah výtrusu
- Obsah výtrusu: zrnitá. [34]
- Kapky uvnitř výtrusu
- Kapky uvnitř výtrusu: přítomný. [34]
- Délka výtrusu
- Délka výtrusu: 9–17,5 µm. [34]
Délka výtrusu: 10–14,5 µm. [21]
Délka výtrusu: 9–17,7 µm. [34]
Délka výtrusu: 10–12 µm. [17] - Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 1,03–1,52. [34]
Poměr délky a šířky výtrusu: 1,03–1,5. [34]
Poměr délky a šířky výtrusu: 1–1,1. [17] - Tvar výtrusu
- Tvar výtrusu: kulovitý. [17]
Tvar výtrusu: kulovitý. [11]
Tvar výtrusu: kulovitý. [1]
Tvar výtrusu: kulovitý. [15]
Tvar výtrusu: téměř kulovitý. [15]
Tvar výtrusu: elipsoidní (široký). [21]
Tvar výtrusu: kulovitý (téměř). [34]
Tvar výtrusu: elipsoidní (široký). [34]
Tvar výtrusu: elipsoidní (příležitostně). [34]
Tvar výtrusu: kulovitý (příležitostně). [34] - Povrch výtrusu
- Povrch výtrusu: hladký. [17]
Povrch výtrusu: hladký. [11]
Povrch výtrusu: hladký. [1]
Povrch výtrusu: hladký. [34]
Trama hymenoforu
Materiál a metody výzkumu
Test s chemickým činidlem – materiál a omezení
Materiál: Dužnina suchého vzorku holotypu A.magnivolvata,Aalto 1600(H),Finsko.
Rozsah odečtu: Úplný text.
Omezení: Koncentrace 2%,suchý materiál a 1–2 minutový čas zůstávají explicitně ve zdrojové metodě; nebyl specifikován fázový čas každé barvy. Intenzita počáteční fialové je slabá; současný model má pouze intense. Samostatný kvalifikátor nahlášen k rozšíření.
Mikroskopická data — zdroj a omezení
Materiál: Tulloss 1994,studium typu Aalto 1600(H),40 výtrusů z 1 plodnice a 1 kolekce;Qprůměrné 1.19,vlastní výsledek autora.
Rozsah odečtu: Úplný text.
Omezení: Průměr je samostatným výsledkem, nikoli hranicí rozměru ani hodnotou všech populací.
Mikroskopická data — zdroj a omezení
Materiál: Holotyp Aalto 1600(H),hodnota průměrného poměru délky k šířce uvedená autorem Aalto 1974.
Rozsah odečtu: Úplný text.
Omezení: Průměr je samostatným výsledkem, nikoli hranicí rozměru ani hodnotou všech populací.
- Výsledky zaznamenané v pramenech — Počet výtrusů na bazidii
- Liczba zarodników na jednej podstawce wynosi 3. [34]
Liczba zarodników na jednej podstawce wynosi 2. [34] [21]
Liczba zarodników na jednej podstawce wynosi 1. [34]
Liczba zarodników na jednej podstawce wynosi 4. [21] [34] [17] - Výsledky zaznamenané v pramenech — Délka výtrusu
- 10–14,5 µm [21]
9,8–15 µm (skrajnie 9–17,7 µm) [34]
10–12 µm [17]
10–16,5 µm (skrajnie 9–17,5 µm) [34] - Výsledky zaznamenané v pramenech — Poměr délky a šířky výtrusu
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [17]
1,07–1,36 (skrajnie 1,03–1,5) [34]
1,06–1,36 (skrajnie 1,03–1,52) [34] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- 8,5–12,8 µm (skrajnie do 14,5 µm) [34]
9–12 µm [17]
8–11,5 µm [21]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [34] - Výsledky zaznamenané v pramenech — Šířka hyfy vnitřní tramy třeně
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [34]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [17]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [34]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [34]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [34]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [34]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [34]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [34]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [34]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [34]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [34]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [34]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [17]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [17]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [17]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [17]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [17]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [17]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [17]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [17]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [17]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [17]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [17]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [17]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [17]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [17]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [17]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [17]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [17]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [17]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [17]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [21]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [21]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [21]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [21]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [21]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [21]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [21]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [21]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [34]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Názvy a vymezení druhu
Polské názvy: Wojewoda (2003, s.45) používá název muchomor oliwkowy pro historický A. battarae, přičemž k němu řadí A. umbrinolutea. Snowarski dokumentuje také název muchomor wielkopochwowy pro A. magnivolvata. Ten má alternativní význam v pojetí synonymie Vargy a spoluautorů (2024). Nebyl přenesen název muchomor dwubarwny: doporučení PTMyk z roku 2025 jej připisuje taxonu A. umbrinolutea. V prostudovaném doporučení nebyl nalezen nový jednoznačný polský název pro úzce vymezený A. battarrae.
Vědecký název: Vědecký název záznamu zůstává Amanita battarrae (Boud.) Bon. Hanss a Moreau (2022) typifikují basionym Amanitopsis vaginata var. battarrae Boud. (1902), přičemž jako lektotyp označují tabuli V, rytinu C Battarry z roku 1755 a epityp JMH2021005 = LIP0004501. Publikace uvádí sběr zpod starého dubu ve Vouhenans ve Francii z 11. července 2021. Epityp stabilizuje význam jména, nepotvrzuje však totožnost všech dříve takto určených položek.
Současné pojetí: Varga a spoluautoři (2024) řadí epityp A. battarrae, holotyp A. magnivolvata Aalto 1600 a epityp A. pachyvolvata AB11-08-56 do jednoho kladu. Považují tyto názvy za synonyma a A. umbrinolutea za samostatný druh. Jejich dřívější maďarská určení jako battarrae se ukázala být umbrinolutea; pod jménem pachyvolvata se vyskytovalo několik taxonů. Proto byl zachován samostatný původ dat finského typu, pozdější evropské revize, polských historických nálezů a indického PUN 9144.
Finský holotyp: stavba plodnice a pochvy
Materiál: Aalto (1974) popisuje tři plodnice sebrané 1. října 1972 v Herniemi u Puujärvi, Karjalohja, Finsko. Holotyp má číslo M.Aalto 1600(H). Klobouk měl 80–115 mm v průměru, třeň 95–125×15–20 mm. Klobouk mladých položek byl sklenutý, šedý s lehkým olivovým odstínem, suchý a lesklý, s 15mm rýhovanou okrajovou zónou. Autorka výslovně uvádí, že nezkoumala zcela zralé plodnice. Z této práce jim nebyl přiřazen dospělý plochý tvar.
Plachetka a změny při sušení: Pochva byla velká, vakovitá, plstnatá, hladká po obou stranách, za čerstva čistě bílá; přibližně 60 mm vysoká a 5–10 mm tlustá. Po dotyku se objevovaly drobné rezavě žluté skvrny přetrvávající po usušení. Pochva praskala na 2–3 cípů 4–5 cm nad bází, aniž by se rozpadala na strupy na klobouku. Na bázi se nacházely dva zřetelné zaoblené záhyby. Tyto údaje byly v dokumentaci zachovány; jejich rozměry nebyly zapsány do rozměrů prstenu nebo šupin. Během sušení se klobouk stával kožovitě hnědým a dřeň plného třeně se propadala, zanechávajíc příčné pruhy. To nebylo považováno za stav vnitřku čerstvé plodnice.
Lokalita: Plodnice rostly 15–20 cm od sebe v zastíněném listnatém lese s lískou, osikou, břízou pýřitou a břízou bělokorou; v blízkosti byl také smrk. V podrostu byla uvedena krušina, vrby, olše šedá a střemcha. Podkladem byla vrstva listí a větviček na jílu. Jedná se o popis jedné finské lokality. Přítomnost smrku v okolí nedokazuje jeho mykorhizu s tímto druhem a datum 1. října nestanovuje polskou sezónu.
Mikroskopie původního materiálu Aalto
Výtrusy a bazidie: Aalto (1974) uvádí výtrusy široce elipsoidní, neamyloidní, délky 10–14,5 µm a šířky 8–11,5 µm. V zápisu 10,0–12,1–14,5×8,0–10,1–11,5 µm jsou střední hodnoty průměry, nikoli další meze. Průměrný poměr délky k šířce činí 1,2. Bazidie jsou kyjovité, 50–75×20–25 µm, čtyřvýtrusé, přičemž byly pozorovány i dvouvýtrusé. To nebylo převedeno na rozsah 2–4, který by doplňoval v této práci neuvedenou hodnotu 3.
Ostří lupenu a hyfy pochvy: Sterilní ostří lupenů tvoří zřetelné bílé vločkovité pletivo. Jeho buňky jsou hruškovité, 10–60×15–30 µm, s převahou větších. Nebyly automaticky označeny jako cheilocystidy. V pochvě převažovaly dlouhé propletené hyfy o šířce 4–10 µm. Autorka v tomto popisu pochvy nepozorovala přezky. Jedná se o výsledek „nepozorováno“ týkající se konkrétního pletiva, nikoli o důkaz nepřítomnosti přezek v celé plodnici.
Výzkum typu a pozdější revize podle Tullosse
Přístup a materiál: Byl načten úplný autorský záznam A. magnivolvata v Amanitaceae/Dikarya, s jasně oddělenými údaji Tullosse (1994) a pozdější revizí. Původní 92stránkový článek v BHL nebyl stažen z důvodu HTTP403. Údaje o typu mají označení[40/1/1]:40 výtrusů z jedné plodnice a jedné položky. Souhrnný soubor[140/6/4] zahrnuje 140 výtrusů z šesti plodnic a čtyř položek. Nebyly označeny za nezávislé výsledky pro dva různé druhy ani za dvě nezávislé typové populace.
Výtrusy: Pro typ je uvedeno(9–)10–16,5(–17,5)×8,5–12,8(–14,5)µm, Q=(1,03–)1,07–1,36(–1,50), průměrnéQ=1,19. Pro souhrnný soubor:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6)µm, Q=(1,03–)1,06–1,36(–1,52). V databázi byly zachovány typické i krajní meze a oddělenost souborů. Výtrusy jsou hladké, hyalinní, tenkostěnné, neamyloidní; od téměř kulovitých po široce elipsoidní, někdy elipsoidní nebo kulovité. Často mají mírně zploštělý adaxiální profil; obří výtrusy bývají z této strany vhloubené. Apikulus je sublaterální, vzácně laterální, válcovitý. Kapky ve výtrusech nebyly identifikovány jako lipidy.
Bazidie a přezky: Bazidie holotypu měřily 52–82×12,5–19 µm a měly nepatrně ztloustlé stěny do 0,5 µm. Přibližně 50% bylo dvousterigmatických,25% čtyřsterigmatických,25% jednosterigmatických, vzácně třísterigmatických; sterigmata do 10×5 µm. V pozdějším zralém materiálu převažovala čtyři sterigmata. Přezky na bázi bazidií byly v holotypu poměrně hojné až hojné a v dospělém materiálu vzácnější. Jejich přítomnost neodporuje výsledku Aalto pro hyfy pochvy: týkají se jiného pletiva a jiného odečtu. Četnosti nebyly přeneseny na jiné varianty.
Pletiva: Hyfy pokožky klobouku měly šířku 1,8–8 µm, větvily se a byly hustě propletené, se subradiálním uspořádáním. U zkoumané dospělé plodnice měla pokožka 30–70 µm a silně želatinovala pouze při povrchu; ve stádiu poupěte kolem 50 µm a bez želatinizace. Trama lupenů byla bilaterální; její hyfy měřily 3,2–7,5 µm, se zduřelými interkalárními úseky do 65×21 µm. V dužnině třeně byly popsány hyfy 3,2–12,5 µm a akrofyzalidy do 164×47 µm, úzce kyjovité, se stěnou u vrcholu 0,5–1 µm. Nebyly zaměněny s hyfami pokožky třeně.
Vrstvy plachetky: U sušeného poupěte měl vnější povrch plachetky tloušťku 90 µm, s částečně želatinizovanými svazky hyf 2,5–12,8 µm. V jejím nitru měly hyfy 2,8–12,2 µm a zduřelé koncové buňky do 96×55 µm; na bázi dospělého třeně dosahovaly buňky 141×63 µm. V pozdějším materiálu měly zbytky plachetky na zralém klobouku buňky do 127×100 µm. Různé povrchy, části a stádia nebyly sloučeny do jednoho nepodmíněného rozsahu buněk celé pochvy. Originály a chybějící rozlišení byly zachovány v dokumentaci rozšíření.
Indický PUN 9144: rozsah a omezení dat
Materiál a metoda: Kumar a Atri (2020) popisují položku PUN 9144 Jitendera Kumara z Dhaulakuan v Himáčalpradéši, Indie, 425 m n.p.m., 28. srpna 2013, v sousedství Shorea robusta. Určení se opírá o makro- a mikroskopii; nebyla prokázána molekulární shoda s epitypem Hansse a Moreaua. Ve studii bylo zachováno určení autorů bez přenášení data a ekologie na Polsko. Byly načteny metody z první strany, popis ze s.34 a vyobrazení 8 ze s.35; kontrola obrazu strany oddělila tento záznam od vedle končícího popisu Russula nobilis.
Výsledky: Pokožka klobouku byla částečně slupitelná do poloviny; zdroj nerozhoduje, zda jde o poloměr, či plochu. Uvedený zlomek byl zapsán bez vymyšleného základu. Výtrusy 10–12×9–12 µm, Q=1–1,1, s apikulem do 1,6 µm; bazidie 29–40×8–12 µm, čtyřvýtrusé, se sterigmaty do 8,2 µm a bez přezek. Ostří lupenů plodné, cystidy chybí. Hyfy pokožky klobouku propletené, septované, do 6,5 µm, v gelovité substanci; pileocystidy chybí. Dužnina třeně obsahovala paralelní, hyalinní, septované hyfy do 32 µm. Samostatný zdroj a materiál byly zachovány i tam, kde se výsledek liší od evropského typu.
Domnělá mykorhiza: Autoři zaznamenali organické spojení mycelia ze spodní části třeně s kořeny salu a označili tento vztah za domnělou ektomykorhizu. V této práci nebylo provedeno molekulární určení kořenů ani inokulační pokus. Pouhá blízkost rostlin nebyla nahrazena jistým mykorhizním vztahem ani návodem k pěstování.
Polsko: výskyt a doba plodení
Dostupná data: Seznam (checklist) Wojewody (2003, s.45) uvádí červen–září a historické lokality mimo jiné v Chráněné krajinné oblasti Cedynia (Cedyński Park Krajobrazowy), na Chojníku, v Tatrách, u Mikołajek a v rezervaci Starożyn v Augustovském pralese. Uvádí lesy a buk. Měsíce byly zapsány přímo jako 6–9; sezóna nebyla odvozena z dat jednotlivých sběrů v GRej ani ze zahraničního atlasu.
Úroveň potvrzení: V tomto seznamu je A. umbrinolutea synonymem A. battarae. Polské nálezy tedy potvrzují použití historického širokého pojetí. Jejich shoda s moderním úzkým A. battarrae vyžaduje revizi položek. PTMyk (2025) také zdůrazňuje potřebu ověření počtu lokalit při nejednotném chápání taxonu. Z toho nevyplývá důkaz nepřítomnosti v Polsku. Současná četnost výskytu nebyla vypočtena z dřívějšího červeného seznamu R.
Původní reakce dužniny na fenol
Průběh testu: Aalto (1974, s.94) zkoumala dužninu suchého exempláře za použití 2% roztoku fenolu. Po 1–2 minutách následovala reakce: zpočátku slabě fialová, poté tmavnutí do vínově červenohnědé barvy. V databázi jsou dvě uspořádané fáze jednoho testu; nebyly zaměněny s přirozenou změnou po otlačení ani s neamyloidností výtrusů. Koncentrace, suchý materiál a časový rozsah byly zachovány v popisu metody. Čas 1–2 minut nebyl svévolně zaměněn za okamžik 90 sekund.
Jedlost: ověřený řetězec zdrojových podkladů
Hodnocení autorů: Wojewoda (2003) uvádí v dřívějším širokém pojetí „Edible“. Český atlas označuje druh za jedlý a SFMU řadí A. battarrae mezi houby vyžadující důkladné vaření kvůli hemolyzinům. First Nature nedoporučuje sběr s poukazem na malé znalosti o jedlosti. Jde o názory a praktické příručky s různým rozsahem vymezení, nikoli o čtyři nezávislé bezpečnostní experimenty.
Hranice potvrzení: V prověřovaných zdrojích se nepodařilo dohledat původní stanovení hemolyzinů ani kontrolovanou studii konzumace materiálu odpovídajícího epitypu A. battarrae. Z toho důvodu nebyla potvrzena bezpečnost ani doba vaření v minutách. Nenalezení publikace nedokazuje netoxicitu, nepravdivost hodnocení v atlasu ani neexistenci výzkumů.
Ověření výskytu — rozsah a omezení
Materiál: Polska,historyczne konto czeklisty Wojewody 2003,s.45. Stanowiska:Cedynia,Chojnik,Tatry,okoliceMikołajek,rezerwatStarozyn.
Rozsah čtení: Úplný text.
Datum kontroly: 19.10.2026.
Omezení: Je potvrzena skutečnost, že polské nálezy byly publikovány pod dřívějším názvem. To není důkaz, že každá položka náleží k úzkému modernímu A.battarrae. Z taxonomické nejistoty nebyla vyvozena absence výskytu.
Ověření výskytu — rozsah a omezení
Materiál: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A.battarae.
Rozsah rešerše: Fragmenty zdrojů.
Přečten byl fragment zdroje; úplný text a metody nebyly ověřeny.
Datum revize: 21.10.2026.
Omezení: Původní určení a rozsah pojmu byly zachovány. Nebylo deklarováno nové zkoumání položek ani prostudování všech publikací citovaných zdrojem.
Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje vyúčtování.
Právní základ a rozsah hodnocení
Nejdůležitější látky a jejich účinky
Ekologické výzkumy
Zdrojová dokumentace
Zjištění zdroje: Ve studii autorů Tervonen a kol. (2019) byla Amanita battarrae zařazena do tabulky ektomykorizních hub s hodnotami LC/0/1/1 ve sloupcích IUCN/Grazed/Aband/All. Zkoumáno bylo 36 lokalit ve středním Finsku: 18 spásaných a 18 opuštěných, během tří návštěv na třech plochách 10 × 10 m. Řádek zaznamenává výskyt v opuštěné části; neurčuje celostátní hojnost, konkrétní hostitelský strom ani ověření DNA.
Stanoviště a výskyt
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Sadecká kotlina | VI–IX |
|
Zdroje
- First Nature, Pat O’Reilly, Amanita battarrae (také [26])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (také [22])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (také [32])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (také [30])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- Nr 26 — materiał, metoda i dokładny wynik źródła
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (také [35])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.