
Essbar

Erfordert Zubereitung

Roh giftig

Lege deinen Standort fest, um Daten für deine Region zu sehen.


Amanita battarrae, der Zweifarbige Scheidenstreifling, ist ein eleganter Blätterpilz aus der Sektion Vaginatae. Typisch für die Art ist der radial gefurchte Hutrand mit charakteristischer zonierter Färbung, das Fehlen einer Manschette am Stiel sowie eine basale häutige Scheide. Er wächst vorwiegend in Gebirgs- und Nadelwäldern auf sauren Böden in eurasischen Regionen.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut, Stiel.
- Fruchtkörperhöhe
- Fruchtkörperhöhe: 150 mm.
Hut
- Hutform
- bei jungen Fruchtkörpern: Hutform: eiförmig.
Hutform: glockenförmig.
Hutform: gewölbt.
bei reifen Fruchtkörpern: Hutform: flach.
bei jungen Fruchtkörpern: Hutform: halbkugelig. - Oberflächenrelief des Hutes
- Oberflächenrelief des Hutes: glatt.
- Hutbedeckung
- Hutbedeckung: kahl.
- Glanz der Hutoberfläche
- Glanz der Hutoberfläche: glänzend.
- Klebrigkeit und Schleimigkeit des Huts
- Klebrigkeit und Schleimigkeit des Huts: klebrig.
- Hutfarbe
- Hutfarbe: grau.
Hutfarbe: graubraun.
Hutfarbe: gelboliv. - Umriss des Hutrandes
- Umriss des Hutrandes: gleichmäßig.
- Oberflächenrelief des Hutrandes
- Oberflächenrelief des Hutrandes: gefurcht.
- Risse und Einrisse des Randes
- Risse und Einrisse des Randes: ohne Risse.
- Hutdurchmesser
- Der Hutdurchmesser beträgt 40–120 mm.
- Hutmitte
- Hutmitte: mit deutlichem Buckel.
Hutmitte: mit deutlichem Buckel.
Hutmitte: Vertieft. - Abziehbarkeit der Huthaut
- Abziehbarkeit der Huthaut: teilweise abziehbar.
Abziehbarkeit der Huthaut: teilweise abziehbar (bis zur Hälfte). - Vorhandensein von Hüllresten auf dem Hut
- Vorhandensein von Hüllresten auf dem Hut: fehlend.
- Farbzonierung des Hutes
- Farbzonierung des Hutes: konzentrisch (deutliche Zonen).
Farbzonierung des Hutes: konzentrisch.
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Lamellen.
Lamellen am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
Ansatz des Hymenophors am Stiel: am Stiel angewachsen (Lamellen).
Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
Ansatz des Hymenophors am Stiel: am Stiel angewachsen (Lamellen).
Ansatz des Hymenophors am Stiel: frei vom Stiel (Lamellen).
- Farbe des Hymenophors
- Farbe des Hymenophors: cremefarben.
Farbe des Hymenophors: weißlich.
Farbe des Hymenophors: cremeweiß.
Farbe des Hymenophors: weiß. - Makroskopische Struktur der freien Lamellenschneide
- Makroskopische Struktur der freien Lamellenschneide: ganzrandig mit glattem Umriss.
Makroskopische Struktur der freien Lamellenschneide: flockig.
bei jungen Fruchtkörpern: Makroskopische Struktur der freien Lamellenschneide: flockig.
bei alten Fruchtkörpern: Makroskopische Struktur der freien Lamellenschneide: gezähnt oder gesägt. - Natürliche Farbe der Lamellenschneide
- Natürliche Farbe der Lamellenschneide: weiß.
- Lamellenabstand
- Lamellenabstand: eng stehend.
Lamellenabstand: weit auseinanderstehend.
Lamellenabstand: ziemlich weit auseinanderstehend.
Lamellenabstand: eng stehend.
Lamellenabstand: dicht stehend. - Lamellendicke
- Lamellendicke: dick.
- Lamellenhöhe
- Lamellenhöhe: bis 7 mm.
- Breitenklasse der Lamellen
- Breitenklasse der Lamellen: breit.
- Vorhandensein von Zwischenlamellen
- Vorhandensein von Zwischenlamellen: vorhanden.
Stiel und Basis
- Stielposition
- Stielposition: zentral.
- Stielform
- Stielform: zylindrisch.
Stielform: nach oben verjüngt.
Stielform: keulenförmig. - Stielfarbe
- im oberen Teil des Stiels: Stielfarbe: weißlich.
Stielfarbe: weiß. - Relief der Stieloberfläche
- im oberen Teil des Stiels: Relief der Stieloberfläche: gefurcht.
- Überzug der Stieloberfläche
- Überzug der Stieloberfläche: schuppig.
- Farbe der Stielornamentation
- Farbe der Stielornamentation: graubraun.
- Stielinneres
- Stielinneres: voll.
Stielinneres: hohl. - Stiellänge
- Stiellänge: 50–200 mm.
- Stieldurchmesser
- Stieldurchmesser: 5–20 mm.
- Scheide
- Scheide: vorhanden.
Scheide: vorhanden.
Scheide: vorhanden.
Scheide: vorhanden.
Scheide: vorhanden.
Ring
- Vorhandensein eines Rings
- Vorhandensein eines Rings: ohne Ring.
Vorhandensein eines Rings: ohne Ring.
Vorhandensein eines Rings: ohne Ring.
Vorhandensein eines Rings: ohne Ring.
Hülle an der Basis
- Aufbau des Velums an der Stielbasis
- Aufbau des Velums an der Stielbasis: sackförmig.
Aufbau des Velums an der Stielbasis: sackförmig.
Aufbau des Velums an der Stielbasis: sackförmig.
- Farbe der Scheide und des Velums an der Stielbasis
- Farbe der Scheide und des Velums an der Stielbasis: weiß (Hüllstruktur an der Stielbasis: Volva).
Farbe der Scheide und des Velums an der Stielbasis: weiß (Hüllstruktur an der Stielbasis: Volva).
Farbe der Scheide und des Velums an der Stielbasis: weiß (Hüllstruktur an der Stielbasis: Volva).
Farbe der Scheide und des Velums an der Stielbasis: weiß (Hüllstruktur an der Stielbasis: Volva). - Stämmigkeit des Stiels
- Stämmigkeit des Stiels: gedrungen.
- Material der Scheide und des Velums an der Stielbasis
- Material der Scheide und des Velums an der Stielbasis: häutig (Hüllstruktur an der Stielbasis: Volva).
Fleisch
- Fleischfarbe
- Fleischfarbe: weiß.
Fleischfarbe: weißlich (Stielfleisch). - Geschmack des Fleisches
- Geschmack des Fleisches: adstringierend.
Geschmack des Fleisches: schwach. - Widerstand des Fleisches gegen Brechen oder Reißen
- Widerstand des Fleisches gegen Brechen oder Reißen: brüchig.
- Konsistenztyp des Fleisches
- Konsistenztyp des Fleisches: fleischig (Hutfleisch).
- Fleischfarbe nach Verletzung
- Fleischfarbe nach Verletzung: keine Farbänderung.
- Fleischgeruch
- Fleischgeruch: angenehm (Fleisch).
Wo und wann er wächst
- Lebensraum
- Lebensraum: Nadelwald.
Lebensraum: Mischwald.
Lebensraum: Laubwald. - Substrat
- Substrat: Boden.
Substrat: Streu. - Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln.
Wuchsweise der Fruchtkörper: verstreute Gruppen.
Wuchsweise der Fruchtkörper: in kleinen Gruppen. - Fruchtzeit
- Die Fruchtkörper erscheinen von Juni bis September.
- Verbreitungsgebiet
- Verbreitungsgebiet: bestätigt.
Essbarkeit und Küche
- Speisewert
- Essbar
- Erforderliche Zubereitung
- Erfordert Zubereitung
- Rohverzehr
- Roh giftig
Recht
- Schutzstatus
- Die Art steht in Polen nicht unter Artenschutz.
- Handel
- Die Art ist in Polen weder für den Handel noch für die Herstellung von Pilzerzeugnissen zugelassen.
Verwechslungsmöglichkeiten
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
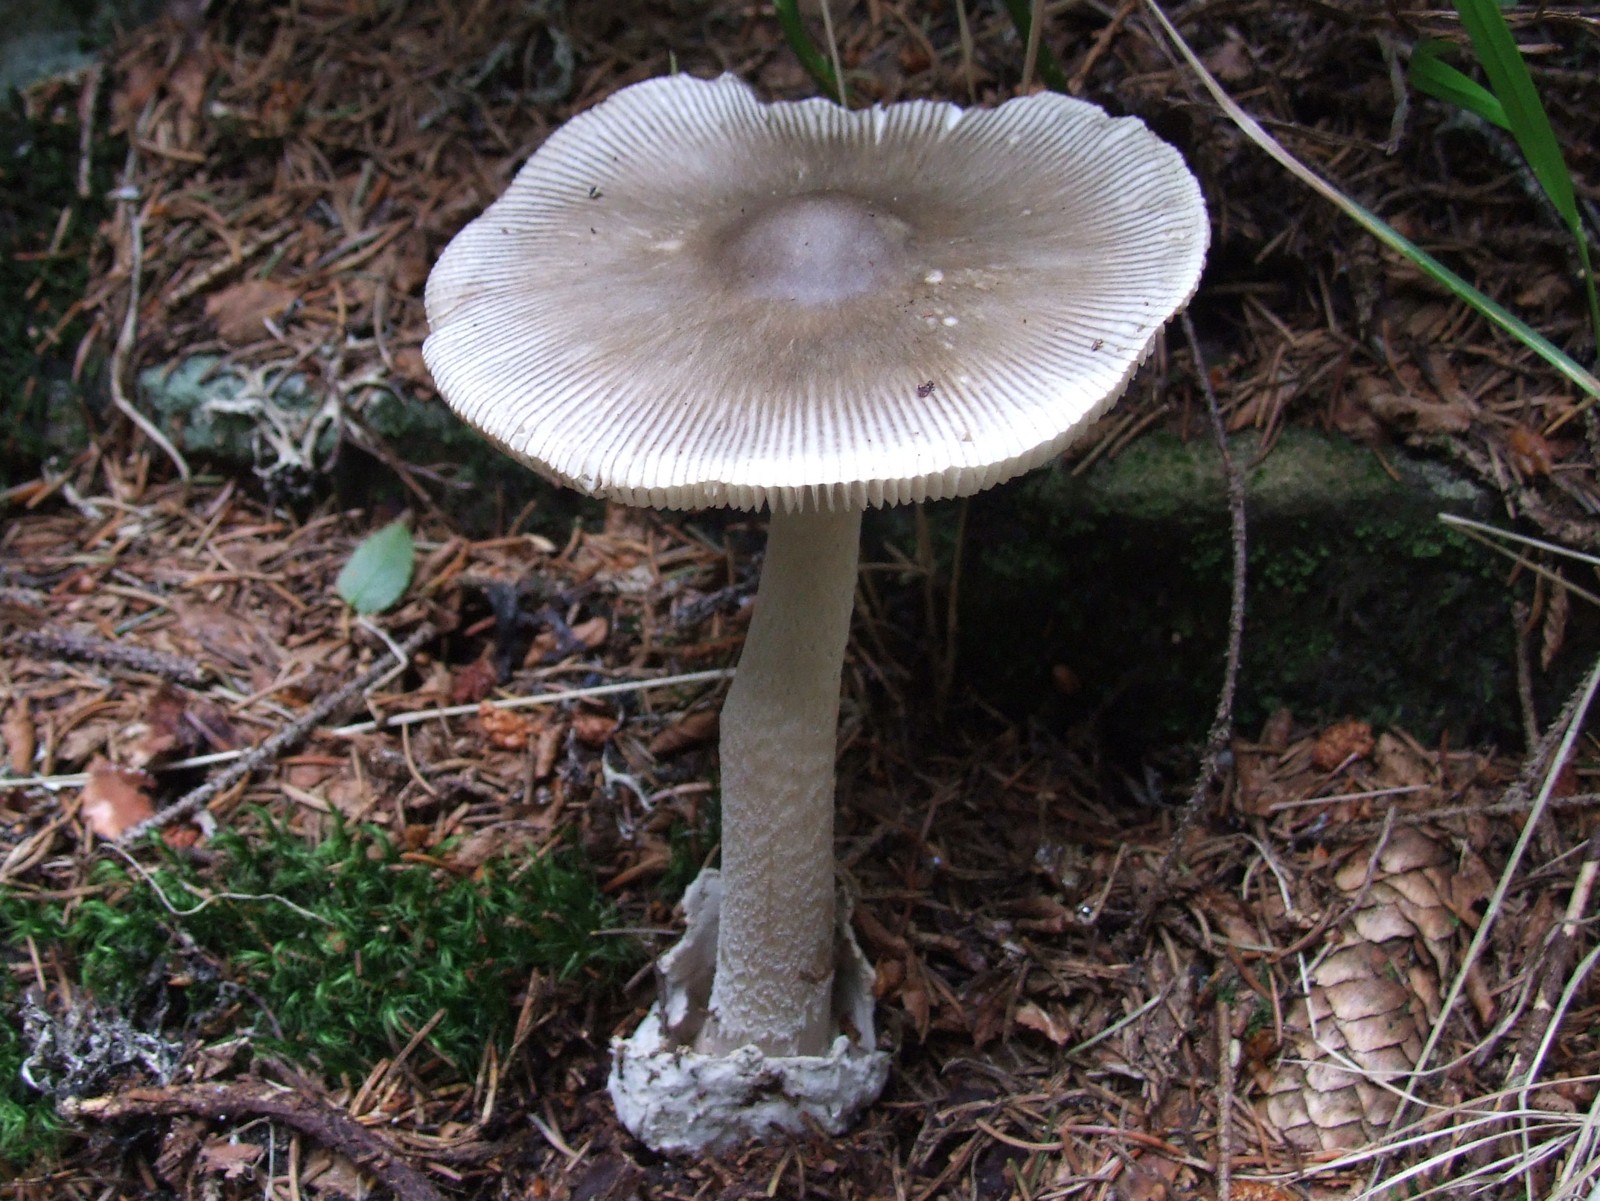
Bildquelle · CC BY-SA 4.0Amanita vaginata
Wichtigste Unterschiede
Der Graue Wulstling (Amanita vaginata) unterscheidet sich vom Olivbraunen Wulstling durch den Hut mit einheitlichem Farbton ohne konzentrische Zonierung sowie den glatten, weißen Stiel ohne dunklere Schuppen.
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
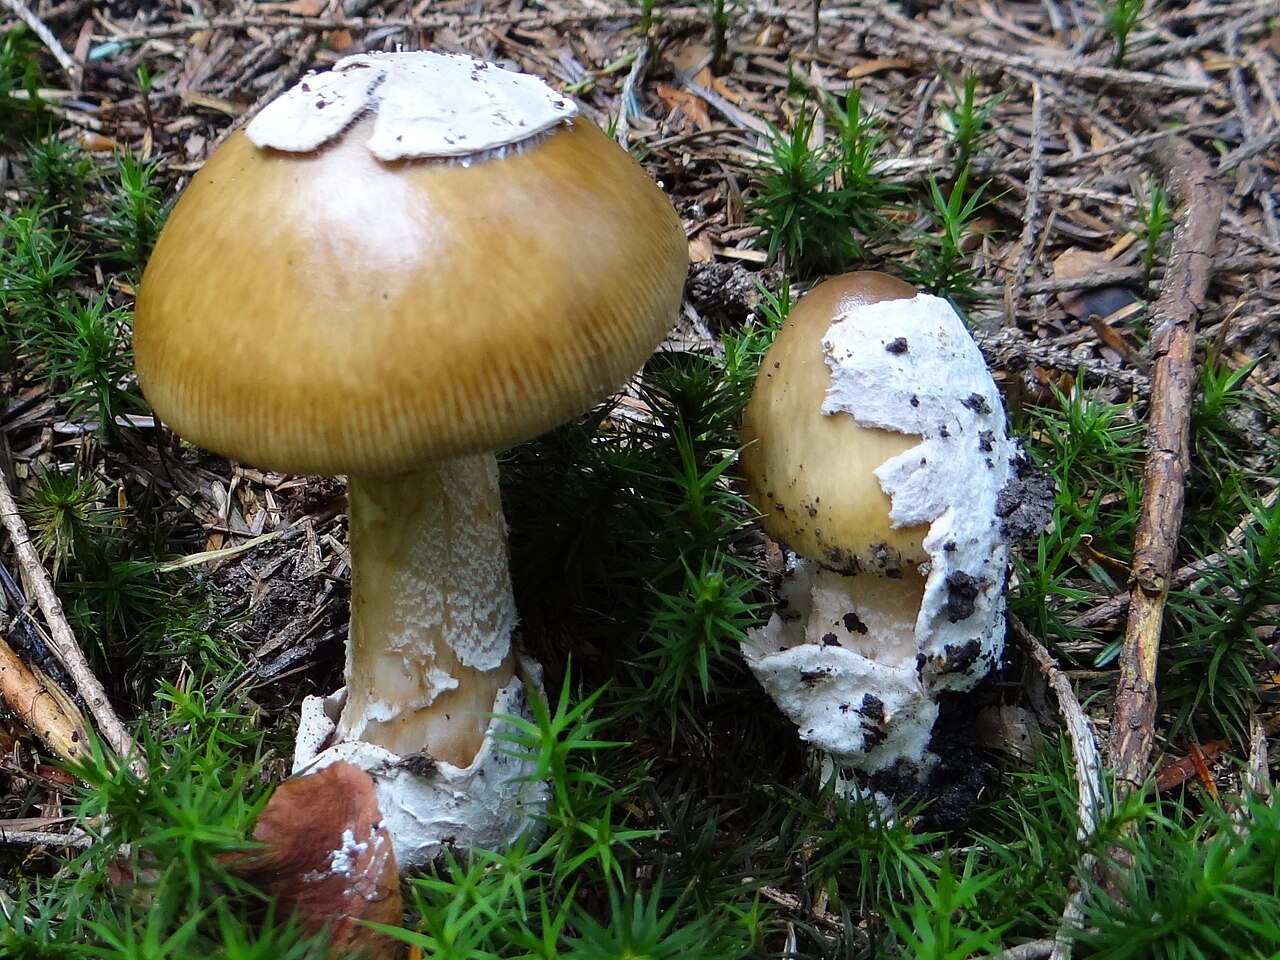
Bildquelle · CC BY-SA 3.0Amanita submembranacea
Wichtigste Unterschiede
Muchomor brązowooliwkowy (Amanita submembranacea) bildet Hüte, die häufiger mit großen Velumlappen bedeckt sind, und seine Volva an der Stielbasis graut auf der Innenseite deutlich ein.
Amanita fulva
Wichtigste Unterschiede
Der Fuchsige Scheidenstreifling (Amanita fulva) unterscheidet sich durch die warme, fahl-orangefarbene oder fuchsbraune Hutfarbe, weiße Lamellen mit unveränderlicher Schneide sowie einen glatten Stiel.
FAQ
Ist Amanita battarrae im rohen Zustand giftig?
Ja, roh enthält die Art hitzelabile Giftstoffe, die erst durch vollständiges Garen unschädlich gemacht werden.
Welche Baumarten sind die wichtigsten Partner von Amanita battarrae?
Der Pilz wächst vor allem in Gemeinschaft mit Fichten, Kiefern und gelegentlich mit Lärchen oder Birken.
In welchen Monaten wachsen die Fruchtkörper?
Die Hauptsaison liegt im Spätsommer und Herbst, meist von August bis Oktober.
Kommt die Art auch im Flachland vor?
Im Tiefland ist sie selten; sie bevorzugt montane und subalpine Lagen mit sauren Böden.
Besitzt dieser Pilz einen Ring am Stiel?
Nein, wie alle Arten der Sektion Vaginatae hat der Zweifarbige Scheidenstreifling keinen Stielring.
Wie schmeckt das gegarte Fleisch?
Der Geschmack nach ausreichender Erhitzung ist mild, angenehm und dezent nussig.
Nach wem wurde die Art benannt?
Das Artepitheton ehrt den italienischen Mykologen und Geistlichen Giovanni Antonio Battarra.
Wird der Pilz zur Wollfärbung verwendet?
Experimentell wurden Pigmente getestet, sie ergeben jedoch nur unauffällige Grau- und Beigetöne.
Gibt es Unterschiede bei der Saison in den Alpen?
In alpinen Hochlagen beginnt die Saison früher ab Juli und endet bereits im September.
Darf der Pilz nur kurz angebraten werden?
Nein, er muss für einen sicheren Verzehr stets vollständig und gründlich durchgegart werden.
Liebhaber
Namen und Geschichte
- Obowiązująca nazwa taksonomiczna
- Amanita battarrae
- Pozostałe nazwy
- muchomor wielkopochwowy
Beobachtungen zu Hause
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Nach 2–24 Stunden den Hut anheben und den Niederschlag betrachten.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: weiß.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenform
- Sporenform: kugelig. Sporenform: kugelig. Sporenform: kugelig. Sporenform: kugelig. Sporenform: fast kugelig. Sporenform: ellipsoid (breit). Sporenform: kugelig (fast). Sporenform: ellipsoid (breit). Sporenform: ellipsoid (gelegentlich). Sporenform: kugelig (gelegentlich).
- Sporenoberfläche
- Sporenoberfläche: glatt. Sporenoberfläche: glatt. Sporenoberfläche: glatt. Sporenoberfläche: glatt.
- Sporenmaße
- Länge 9–17,7 µm, Breite 7,2–15,6 µm.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Experiment mit Phenol
- Material
- Fruchtkörperfleisch
- Reagenz
- Phenol
- Durchführung
- Im beschriebenen Versuch wurde Phenol auf das angegebene Material angewendet.
- Bedingungen und fehlende Quellenangaben
In der Quelle nicht angegeben: Probenvorbereitung, Phenolkonzentration, Reagenzmenge, Temperatur, Ablesezeit, genaue Art des Reagenzauftrags.
Beobachtung / Ergebnis
- Quellenergebnis
- Im Fleisch wurde nach Anwendung von Phenol eine in der Quelle als „violett“ beschriebene Farbe erzielt.
- Quellenergebnis
- Im Fleisch wurde nach Anwendung von Phenol eine in der Quelle als „weinrotbraun“ beschriebene Farbe erzielt.
Ökologie und Verbreitung
- Bodenreaktion
- Bodenreaktion: sauer.
- Laubbäume in der Umgebung
- Laubbäume in der Umgebung: Birke.
Laubbäume in der Umgebung: Eiche.
Laubbäume in der Umgebung: Buche.
Laubbäume in der Umgebung: Hainbuche.
Laubbäume in der Umgebung: Linde. - Nadelbäume in der Umgebung
- Nadelbäume in der Umgebung: Fichte.
Nadelbäume in der Umgebung: Tanne.
Nadelbäume in der Umgebung: Kiefer. - Ernährungsweise
- Ernährungsweise: ektomykorrhizal.
Außerkulinarische Verwendungen
Außerhalb der Ernährung existieren für Amanita battarrae nur wenige historisch und praktisch belegte Verwendungen. In der mykologischen Dokumentation und im Museumswesen dienten getrocknete Fruchtkörper seit dem 19. Jahrhundert als Belegmaterial in Herbarien zur Dokumentation der Artenvielfalt in Gebirgswäldern. Aufgrund der markanten Pigmentierung der Huthaut wurden Scheidenstreiflinge in vereinzelten volkskundlichen Versuchen zur natürlichen Wollfärbung erprobt, wobei die resultierenden Farbtöne jedoch meist blasse Beige- und Graunuancen ergaben. In Naturlehrpfaden und forstlichen Anschauungssammlungen werden konservierte Fruchtkörper oder Nachbildungen eingesetzt, um Waldstrukturen und Lebensgemeinschaften montaner Fichtenforste anschaulich darzustellen. Andere praktische oder handwerkliche Nutzungen sind nicht überliefert.
Geschichte und Kultur
Der Zweifarbige Scheidenstreifling wurde zu Ehren des italienischen Geistlichen und Naturforschers Giovanni Antonio Battarra benannt, der im 18. Jahrhundert grundlegende mykologische Abhandlungen verfasste. In der ländlichen Überlieferung Italiens und Teilen des Balkans tauchen Scheidenstreiflinge historisch gelegentlich in regionalen Namensgebungen auf, die sich auf ihre scheidenartige Hülle beziehen. In der mitteleuropäischen Volkskultur wurden ringlose Wulstlinge im Volksmund bisweilen als Sonderlinge des Waldes betrachtet, da das Fehlen einer Manschette sie von vielen klassischen Hutpilzen unterschied. Schriftliche Erwähnungen abseits der mykologischen Fachliteratur finden sich vor allem in regionalen Naturstudien und Tagebüchern botanischer Wanderer des 19. Jahrhunderts, in denen die zierliche, zweifarbige Erscheinung als Sinnbild der unberührten Gebirgsvegetation gewürdigt wurde.
Essbarkeit und Sicherheit
Amanita battarrae gilt im rohen Zustand als giftig, da rohe Fruchtkörper hitzelabile Toxine enthalten, die Magen-Darm-Beschwerden und Hämolyse hervorrufen können. Durch gründliches Erhitzen und vollständiges Durchgaren werden diese schädlichen Verbindungen zuverlässig inaktiviert, sodass der Pilz danach als essbar eingestuft wird. Ein sicherer Verzehr setzt voraus, dass nur frische, madenfreie Exemplare verwendet werden und die Garzeit ausreichend lang bemessen ist. Der Eigengeschmack wird als mild, bisweilen dezent nussig und pilzartig beschrieben, das Fleisch ist jedoch eher zart und zerbrechlich. Kulinarisch spielt die Art regional eine unterschiedliche Rolle. Während sie im deutschsprachigen Raum wegen der Brüchigkeit und des nötigen Erhitzens nur selten gezielt für die Küche genutzt wird, schätzen Sammler in Teilen Mittel- und Osteuropas gegarte Scheidenstreiflinge durchaus als schmackhafte Speisepilze.
Lebensraum und Vorkommen
Amanita battarrae im modernen, engeren europäischen Artkonzept (sensu stricto) ist vor allem mit Laubbäumen wie Buchen oder Birken assoziiert, während ältere Angaben einer primären Bindung an Nadelwälder überwiegend auf früher zusammengefasste verwandte Taxa zurückgehen; Nadelbäume sind dabei nicht gänzlich ausgeschlossen. Der Pilz bevorzugt bodensaure, nährstoffarme, moosige und silikatische Böden, oft an Hängen oder Waldrändern. Das Verbreitungsgebiet erstreckt sich über weite Teile Mittel-, Nord- und Osteuropas sowie Teile des nördlichen Asiens. In Nordeuropa und in den mitteleuropäischen Mittelgebirgen wie dem Bayerischen Wald, dem Harz und den Alpen tritt die Art regelmäßig auf, während sie im atlantisch geprägten Tiefland Westeuropas sehr selten ist oder gänzlich fehlt. Die Hauptsaison der Fruchtkörperbildung beginnt meist im Spätsommer ab August und reicht bis in den Spätherbst in den Oktober hinein. In alpinen Hochlagen verschiebt sich die Fruktifikation witterungsbedingt häufig auf ein kürzeres Zeitfenster zwischen Ende Juli und Mitte September.
Quellen
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Speisewert
- Essbar — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Atlasbewertung in der tschechischen weiten Auffassung A.battarrae/umbrinolutea; kein Ergebnis eines Ernährungsexperiments.
- Rohverzehr
- Giftig
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; das Sternchen bedeutet einen Autorenvermerk auf Hämolysine. Bewertung einer Sekundärarbeit,bezogen auf keine identifizierte artspezifische Inhaltsstoffuntersuchung.
- Speisewert
- Giftig
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; das Sternchen bedeutet einen Autorenvermerk auf Hämolysine. Bewertung einer Sekundärarbeit,bezogen auf keine identifizierte artspezifische Inhaltsstoffuntersuchung.
- Erforderliche Zubereitung
- Erfordert Zubereitung
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Quellgemäßer Verarbeitungsbedarf,ohne nicht angegebene Zeit,Temperatur oder Sicherheitsgarantie.
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Amanita battarrae
Wissenschaftliche Namen und Taxonomie
Der korrekte wissenschaftliche Name des Taxons lautet Amanita battarrae (Boud.) Bon, eingestuft im Rang einer Art innerhalb der Familie der Wulstlingsverwandten (Amanitaceae). Er wurde auf der Grundlage des Basionyms Amanitopsis battarrae Boud. aus dem Jahr 1902 gebildet.
Wissenschaftliche Namen und Taxonomie
Eine moderne phylogenetische Revision der Sektion Vaginatae durch das Team um Varga im Jahr 2024 trennte Amanita battarrae und Amanita umbrinolutea als zwei eigenständige Arten. In dieser Auffassung wurden die Namen Amanita pachyvolvata und Amanita magnivolvata als Synonyme von A. battarrae anerkannt.
Wissenschaftliche Namen und Taxonomie
Eine Revision historischer Herbarsammlungen in Mitteleuropa zeigte, dass ein beträchtlicher Teil früherer als A. battarrae bestimmter Aufsammlungen in Wirklichkeit A. umbrinolutea darstellte, während unter dem Namen A. pachyvolvata beschriebene Materialien ein Gemisch von Taxa bildeten, das u. a. A. battarrae, A. spadicea und A. supravolvata umfasste.
Wissenschaftliche Namen und Taxonomie
Die taxonomische Geschichte der Art umfasst aufeinanderfolgende Rangänderungen: von der Einstufung als Varietät über die Erhebung in den Artstatus durch Riel im Jahr 1907 bis hin zur formalen Kombination in der Gattung Amanita, die von Marcel Bon im Jahr 1985 veröffentlicht wurde.
Material und wissenschaftliche Untersuchungsmethoden
Bei den anatomischen Untersuchungen des asiatischen Materials wurden Lichtmikroskopie in Melzers Reagenz sowie Rasterelektronenmikroskopie bei Vergrößerungen von 3000× bis 15000× angewandt.
Material und wissenschaftliche Untersuchungsmethoden
Die Revision der europäischen Sektion Vaginatae aus dem Jahr 2024 stützte sich auf die Sequenzierung von vier DNA-Loci (ITS, LSU, RPB1, TEF1-α) sowie die mikroskopische Analyse der Volvagewebe und Sporenmaße in Stichproben von jeweils 30 Messungen pro Exemplar.
- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[18] [2] [19]
Ökologie und Verbreitung
- Mykorrhizapartner
- Indien, laut Quelle vermutete Mykorrhiza-Assoziation, keine dokumentierte Bestätigung der Mykorrhiza durch Wurzeluntersuchung, auf die Beobachtung der Quelle beschränkt: Mykorrhizapartner: Shorea robusta. [29]
Labordiagnostik
Dane ustrukturyzowane
Basidien
- Sterigmenlänge der Basidie
- Sterigmenlänge der Basidie: bis 8,2 µm. [29]
Sterigmenlänge der Basidie: bis 10 µm. [34] - Sporen je Basidie
- Die Sporenzahl je Basidie beträgt 4. [17]
Die Sporenzahl je Basidie beträgt 1. [34]
Die Sporenzahl je Basidie beträgt 4. [21]
Die Sporenzahl je Basidie beträgt 2. [34]
Die Sporenzahl je Basidie beträgt 4. [34]
Die Sporenzahl je Basidie beträgt 2. [21]
Die Sporenzahl je Basidie beträgt 3. [34]
Hymenialzystiden
- Vorhandensein von Zystiden im Hymenium
- Vorhandensein von Zystiden im Hymenium: fehlend. [29]
Sonstige Labormerkmale
- Länge der Lamellenschneidenzelle
- Länge der Lamellenschneidenzelle: 10–60 µm. [21]
- Form anderer Lamellenschneidenzellen
- Form anderer Lamellenschneidenzellen: birnenförmig. [21]
- Breite der Lamellenschneidenzelle
- Breite der Lamellenschneidenzelle: 15–30 µm. [21]
- Fertilität der Lamellenschneide
- Fertilität der Lamellenschneide: steril. [21]
Fertilität der Lamellenschneide: fertil. [29] - Vorhandensein von Pileozystiden
- Vorhandensein von Pileozystiden: fehlend. [29]
- Länge der Zelle der inneren Stieltrama
- Länge der Zelle der inneren Stieltrama: bis 164 µm. [34]
- Breite der Zelle der inneren Stieltrama
- Breite der Zelle der inneren Stieltrama: bis 47 µm. [34]
- Breite der Hyphe der inneren Stieltrama
- Breite der Hyphe der inneren Stieltrama: 3,2–12,5 µm. [34]
Breite der Hyphe der inneren Stieltrama: bis 32 µm. [29] - Hyphenbreite des Velum universale
- Hyphenbreite des Velum universale: 4–10 µm. [21]
Huthaut
- Anordnung der Huthauthyphen
- Anordnung der Huthauthyphen: verflochten. [34]
Anordnung der Huthauthyphen: verflochten. [29] - Breite der Elemente der Huthaut
- Breite der Elemente der Huthaut: 1,8–8 µm. [34]
Breite der Elemente der Huthaut: bis 6,5 µm. [29] - Verzweigung der Huthauthyphe
- Verzweigung der Huthauthyphe: verzweigt. [34]
- Septierung der Huthauthyphen
- Septierung der Huthauthyphen: septiert. [29]
- Einbettung der Huthauthyphen in eine gallertige Substanz
- Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden. [29]
Sporen
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite
- Mittleres Verhältnis von Sporenlänge zu Sporenbreite: 1,2 (Mittelwert). [21]
Mittleres Verhältnis von Sporenlänge zu Sporenbreite: 1,19 (Mittelwert). [34] - Vorhandensein des Hilarfortsatzes der Basidiospore
- Vorhandensein des Hilarfortsatzes der Basidiospore: vorhanden. [34]
Vorhandensein des Hilarfortsatzes der Basidiospore: vorhanden. [29] - Lage des Hilaranhangs der Basidiospore
- Lage des Hilaranhangs der Basidiospore: fast seitlich. [34]
- Form des Hilaranhängsels der Basidiospore
- Form des Hilaranhängsels der Basidiospore: zylindrisch. [34]
- Länge des Hilaranhängsels der Basidiospore
- Länge des Hilaranhängsels der Basidiospore: bis 1,6 µm. [29]
- Sporenfarbe unter dem Mikroskop
- Sporenfarbe unter dem Mikroskop: hyalin. [34]
- Sporeninhalt
- Sporeninhalt: körnig. [34]
- Tropfen im Inneren der Spore
- Tropfen im Inneren der Spore: vorhanden. [34]
- Sporenlänge
- Sporenlänge: 9–17,5 µm. [34]
Sporenlänge: 10–14,5 µm. [21]
Sporenlänge: 9–17,7 µm. [34]
Sporenlänge: 10–12 µm. [17] - Verhältnis von Sporenlänge zu Sporenbreite
- Verhältnis von Sporenlänge zu Sporenbreite: 1,03–1,52. [34]
Verhältnis von Sporenlänge zu Sporenbreite: 1,03–1,5. [34]
Verhältnis von Sporenlänge zu Sporenbreite: 1–1,1. [17] - Sporenform
- Sporenform: kugelig. [17]
Sporenform: kugelig. [11]
Sporenform: kugelig. [1]
Sporenform: kugelig. [15]
Sporenform: fast kugelig. [15]
Sporenform: ellipsoid (breit). [21]
Sporenform: kugelig (fast). [34]
Sporenform: ellipsoid (breit). [34]
Sporenform: ellipsoid (gelegentlich). [34]
Sporenform: kugelig (gelegentlich). [34]
Hymenophoraltrama
- Typ der Hymenophoraltrama
- Typ der Hymenophoraltrama: bilateral. [17]
Typ der Hymenophoraltrama: bilateral. [34] - Breite der Tramahyphen
- Breite der Tramahyphen: 3,2–7,5 µm. [34]
- Länge der aufgeblasenen Zelle der Hymenophortrama
- Länge der aufgeblasenen Zelle der Hymenophortrama: bis 65 µm. [34]
- Breite der aufgeblasenen Zelle der Hymenophortrama
- Breite der aufgeblasenen Zelle der Hymenophortrama: bis 21 µm. [34]
Untersuchungsmaterial und -methoden
Test mit chemischem Reagenz — Material und Einschränkungen
Material: Fleisch des getrockneten Holotypusexemplars A.magnivolvata,Aalto 1600(H),Finnland.
Erfassungsbereich: Volltext.
Einschränkungen: Konzentration 2%,trockenes Material und 1–2 Minuten Zeit verbleiben explizit in der Quellmethode; die Phasenzeit für jede Farbe wurde nicht spezifiziert. Die Intensität des anfänglichen Violetts ist schwach; das aktuelle Modell verfügt nur über intense. Ein separater Qualifikator wurde zur Erweiterung gemeldet.
Mikroskopische Daten — Quelle und Einschränkungen
Material: Tulloss 1994,Untersuchung des Typs Aalto 1600(H),40 Sporen von 1 Fruchtkörper und 1 Aufsammlung;mittleres Q 1.19,eigenes Ergebnis des Autors.
Erfassungsbereich: Volltext.
Einschränkungen: Der Mittelwert ist ein separates Ergebnis, keine Dimensionsgrenze und kein Wert aller Populationen.
Mikroskopische Daten — Quelle und Einschränkungen
Material: Holotypus Aalto 1600(H),Wert des mittleren Längen-Breiten-Verhältnisses angegeben von Aalto 1974.
Erfassungsbereich: Volltext.
Einschränkungen: Der Mittelwert ist ein separates Ergebnis, keine Dimensionsgrenze und kein Wert aller Populationen.
- In den Quellen dokumentierte Ergebnisse — Sporen je Basidie
- Liczba zarodników na jednej podstawce wynosi 3. [34]
Liczba zarodników na jednej podstawce wynosi 2. [34] [21]
Liczba zarodników na jednej podstawce wynosi 1. [34]
Liczba zarodników na jednej podstawce wynosi 4. [21] [34] [17] - In den Quellen dokumentierte Ergebnisse — Breite der Elemente der Huthaut
- do 6,5 µm [17]
1,8–8 µm [34] - In den Quellen dokumentierte Ergebnisse — Sporenlänge
- 10–14,5 µm [21]
9,8–15 µm (skrajnie 9–17,7 µm) [34]
10–12 µm [17]
10–16,5 µm (skrajnie 9–17,5 µm) [34] - In den Quellen dokumentierte Ergebnisse — Verhältnis von Sporenlänge zu Sporenbreite
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [17]
1,07–1,36 (skrajnie 1,03–1,5) [34]
1,06–1,36 (skrajnie 1,03–1,52) [34] - In den Quellen dokumentierte Ergebnisse — Sporenbreite
- 8,5–12,8 µm (skrajnie do 14,5 µm) [34]
9–12 µm [17]
8–11,5 µm [21]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [34] - In den Quellen dokumentierte Ergebnisse — Breite der Hyphe der inneren Stieltrama
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [34]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [17]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [34]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [34]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [34]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [34]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [34]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [34]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [34]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [34]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [34]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [34]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [17]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [17]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [17]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [17]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [17]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [17]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [17]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [17]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [17]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [17]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [17]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [17]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [17]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [17]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [17]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [17]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [17]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [17]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [17]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [21]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [21]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [21]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [21]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [21]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [21]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [21]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [21]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [34]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Namen und Abgrenzungen der Artbestimmung
Polnische Namen: Wojewoda (2003, S.45) verwendet den Namen muchomor oliwkowy für das historische A. battarae und rechnet A. umbrinolutea dazu. Snowarski dokumentiert auch den Namen muchomor wielkopochwowy für A. magnivolvata. Letzterer hat eine alternative Bedeutung im Rahmen der Synonymie nach Varga und Mitarbeitern (2024). Der Name muchomor dwubarwny wurde nicht übertragen: Die Empfehlung der PTMyk aus dem Jahr 2025 ordnet ihn A. umbrinolutea zu. In der eingesehenen Empfehlung wurde kein neuer eindeutiger polnischer Name für das eng aufgefasste A. battarrae gefunden.
Wissenschaftlicher Name: Der wissenschaftliche Name des Datensatzes bleibt Amanita battarrae (Boud.) Bon. Hanss und Moreau (2022) typisieren das Basionym Amanitopsis vaginata var. battarrae Boud. (1902), indem sie Tafel V, Abbildung C von Battarra aus dem Jahr 1755 als Lectotypus sowie den Epitypus JMH2021005 = LIP0004501 festlegen. Die Publikation gibt einen Fund unter einer alten Eiche in Vouhenans in Frankreich vom 11. Juli 2021 an. Der Epitypus stabilisiert die Bedeutung des Namens, bestätigt jedoch nicht die Identität aller früher so bestimmten Belege.
Moderne Auffassung: Varga und Mitarbeiter (2024) stellen den Epitypus A. battarrae, den Holotypus A. magnivolvata Aalto 1600 sowie den Epitypus A. pachyvolvata AB11-08-56 in eine Klade. Sie erkennen diese Namen als Synonyme an und betrachten A. umbrinolutea als eigenständige Art. Ihre früheren ungarischen Bestimmungen als battarrae erwiesen sich als umbrinolutea; unter dem Namen pachyvolvata traten mehrere Taxa auf. Daher wurde die getrennte Herkunft der Daten des finnischen Typus, der späteren europäischen Revision, der polnischen historischen Nachweise und des indischen PUN 9144 beibehalten.
Finnischer Holotypus: Bau von Fruchtkörper und Volva
Material: Aalto (1974) beschreibt drei Fruchtkörper, die am 1. Oktober 1972 in Herniemi bei Puujärvi, Karjalohja, Finnland gesammelt wurden. Der Holotypus trägt die Nummer M.Aalto 1600(H). Der Hut hatte einen Durchmesser von 80–115 mm, der Stiel 95–125×15–20 mm. Der Hut junger Exemplare war gewölbt, grau mit leichtem Olivton, trocken und glänzend, mit einer 15-mm breiten gerieften Randzone. Die Autorin weist ausdrücklich darauf hin, dass sie keine vollständig reifen Fruchtkörper untersucht hat. Ihnen wurde aus dieser Arbeit keine ausgewachsene flache Form zugeordnet.
Hülle und Veränderungen beim Trocknen: Die Volva war groß, sackförmig, filzig, beidseitig glatt, frisch rein weiß; etwa 60 mm hoch und 5–10 mm dick. Nach Berührung zeigten sich feine rostgelbliche Flecken, die auch nach dem Trocknen bestehen blieben. Die Volva riss in 2–3 Lappen 4–5 cm über der Basis auf, ohne in Schuppen auf dem Hut zu zerfallen. An der Basis traten zwei deutliche abgerundete Falten auf. Diese Daten wurden in der Dokumentation beibehalten; ihre Maße wurden nicht in die Maße des Rings oder der Schuppen eingetragen. Beim Trocknen wurde der Hut lederbraun, und das Mark des vollen Stiels fiel ein, wobei Querbänder zurückblieben. Dies wurde nicht als Zustand des Inneren des frischen Fruchtkörpers gewertet.
Standort: Die Fruchtkörper wuchsen 15–20 cm voneinander entfernt in einem schattigen Laubwald mit Hasel, Espe, Moor-Birke und Hänge-Birke; in der Nähe stand auch Fichte. Im Unterholz wurden Faulbaum, Weiden, Grau-Erle und Traubenkirsche genannt. Das Substrat war eine Schicht aus Blättern und Zweigen über Lehm. Dies ist die Beschreibung eines einzelnen finnischen Standorts. Das Vorhandensein von Fichte in der Umgebung belegt keine Mykorrhiza mit dieser Art, und das Datum 1. Oktober legt die polnische Saison nicht fest.
Mikroskopie des Originalmaterials von Aalto
Sporen und Basidien: Aalto (1974) gibt breit ellipsoidische, inamyloide Sporen mit einer Länge von 10–14,5 µm und einer Breite von 8–11,5 µm an. In der Schreibweise 10,0–12,1–14,5×8,0–10,1–11,5 µm sind die mittleren Werte Durchschnittswerte und keine zusätzlichen Grenzwerte. Das durchschnittliche Längen-Breiten-Verhältnis beträgt 1,2. Die Basidien sind keulig, 50–75×20–25 µm, viersporig, wobei auch zweisporige beobachtet wurden. Dies wurde nicht durch den Bereich 2–4 ersetzt, der einen in dieser Arbeit nicht angegebenen Wert 3 hinzufügen würde.
Lamellenschneide und Volvahyphen: Die sterile Lamellenschneide wird von einem deutlichen weißen flockigen Gewebe gebildet. Seine Zellen sind birnenförmig, 10–60×15–30 µm, überwiegend größere. Sie wurden nicht automatisch als Cheilozystiden bezeichnet. In der Volva überwogen lange, verflochtene Hyphen mit einer Breite von 4–10 µm. Die Autorin sah in dieser Beschreibung der Volva keine Schnallen. Dies ist ein Ergebnis vom Typ „nicht beobachtet“, das sich auf ein bestimmtes Gewebe bezieht; kein Beweis für das Fehlen von Schnallen im gesamten Fruchtkörper.
Typusuntersuchung und spätere Revision von Tulloss
Zugang und Material: Das vollständige Autorenkonto A. magnivolvata in Amanitaceae/Dikarya wurde eingesehen, mit klar getrennten Daten von Tulloss (1994) und der späteren Revision. Der originale 92-seitige Artikel im BHL wurde aufgrund von HTTP403 nicht heruntergeladen. Die Typusdaten tragen die Bezeichnung[40/1/1]:40 Sporen aus einem Fruchtkörper und einer Aufsammlung. Der Gesamtdatensatz[140/6/4] umfasst 140 Sporen aus sechs Fruchtkörpern und vier Aufsammlungen. Sie wurden weder als unabhängige Ergebnisse für zwei verschiedene Arten noch als zwei unabhängige Typuspopulationen bezeichnet.
Sporen: Für den Typus angegeben:(9–)10–16,5(–17,5)×8,5–12,8(–14,5)µm, Q=(1,03–)1,07–1,36(–1,50), mittleresQ=1,19. Für den Gesamtdatensatz:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6)µm, Q=(1,03–)1,06–1,36(–1,52). In der Datenbank wurden typische Grenzen, Extremwerte und die Eigenständigkeit der Datensätze beibehalten. Die Sporen sind glatt, hyalin, dünnwandig, inamyloid; von fast kugelig bis breit ellipsoid, gelegentlich ellipsoid oder kugelig. Oft weisen sie ein etwas abgeflachtes adaxiales Profil auf; Riesensporen sind auf dieser Seite zuweilen konkav. Der Apiculus ist sublateral, selten lateral, zylindrisch. Tropfen in den Sporen wurden nicht als Lipide identifiziert.
Basidien und Schnallen: Die Basidien des Holotypus maßen 52–82×12,5–19 µm und hatten leicht verdickte Wände bis 0,5 µm. Etwa 50% waren zweisterigmig,25% viersterigmig,25% einsterigmig, selten dreisterigmig; Sterigmen bis 10×5 µm. Im späteren reifen Material dominierten vier Sterigmen. Schnallen an der Basis der Basidien waren im Holotypus ziemlich häufig bis häufig und im reifen Material seltener. Ihr Vorhandensein widerspricht nicht dem Ergebnis von Aalto für die Hyphen der Volva: Sie betreffen anderes Gewebe und eine andere Ablesung. Die Häufigkeiten wurden nicht auf andere Varianten übertragen.
Gewebe: Die Hyphen der Huthaut waren 1,8–8 µm breit, verzweigt und dicht verflochten, mit subradialer Anordnung. Bei dem untersuchten reifen Fruchtkörper war die Huthaut 30–70 µm dick und vergelatinisierte nur an der Oberfläche stark; im Knospenstadium etwa 50 µm und ohne Gelatinisierung. Die Lamellentrama war bilateral; ihre Hyphen 3,2–7,5 µm, mit aufgeblasenen interkalaren Abschnitten bis 65×21 µm. Im Stielfleisch wurden Hyphen von 3,2–12,5 µm sowie Akrophysaliden bis 164×47 µm beschrieben, schmal keulig, mit einer Wand an der Spitze von 0,5–1 µm. Sie wurden nicht mit den Hyphen der Stielhaut verwechselt.
Hüllschichten: In der getrockneten Knospe war die äußere Oberfläche des Velums 90 µm dick, mit teilweise vergelatinisierten Hyphenbündeln von 2,5–12,8 µm. In ihrem Inneren maßen die Hyphen 2,8–12,2 µm und aufgeblasene Terminalzellen bis 96×55 µm; an der Basis des reifen Stiels erreichten die Zellen 141×63 µm. In späterem Material wiesen Velumflocken auf dem reifen Hut Zellen bis 127×100 µm auf. Unterschiedliche Oberflächen, Teile und Stadien wurden nicht zu einem einzigen bedingungslosen Zellbereich der gesamten Volva zusammengeführt. Originale und fehlende Differenzierungen wurden in der Dokumentation der Erweiterungen beibehalten.
Indischer PUN 9144: Umfang und Grenzen der Daten
Material und Methode: Kumar und Atri (2020) beschreiben die Aufsammlung PUN 9144 von Jitender Kumar aus Dhaulakuan in Himachal Pradesh, Indien,425 m ü. M.,28 August 2013, in der Nachbarschaft von Shorea robusta. Die Bestimmung stützt sich auf Makro- und Mikroskopie; eine molekulare Übereinstimmung mit dem Epitypus von Hanss und Moreau wurde nicht nachgewiesen. In der Untersuchung wurde die Bestimmung der Autoren beibehalten, ohne Datum und Ökologie auf Polen zu übertragen. Gelesen wurden die Methoden von der ersten Seite, die Beschreibung von S.34 und die Abbildung 8 von S.35; eine Überprüfung des Seitenbildes trennte diesen Bericht von der daneben endenden Beschreibung von Russula nobilis.
Ergebnisse: Die Huthaut war teilweise bis zur Hälfte abziehbar; die Quelle lässt offen, ob es sich um den Radius oder die Fläche handelt. Der angegebene Bruchteil wurde ohne erfundene Bezugsgröße übernommen. Sporen 10–12×9–12 µm, Q=1–1,1, mit Apiculus bis 1,6 µm; Basidien 29–40×8–12 µm, viersporig, mit Sterigmen bis 8,2 µm und ohne Schnallen. Lamellenschneide fertil, Zystiden fehlen. Hyphen der Huthaut verflochten, septiert, bis 6,5 µm, in gallertartiger Substanz; Pileozystiden fehlen. Das Stielfleisch enthielt parallele, hyaline, septierte Hyphen bis 32 µm. Separate Quelle und separates Material wurden auch dort beibehalten, wo das Ergebnis vom europäischen Typus abweicht.
Mutmaßliche Mykorrhiza: Die Autoren stellten eine organische Verbindung des Myzels von der Stielbasis mit den Wurzeln von Sal fest und bezeichneten die Beziehung als mutmaßliche Ektomykorrhiza. In dieser Arbeit wurden weder eine molekulare Bestimmung der Wurzeln noch ein Inokulationsexperiment durchgeführt. Die bloße Nähe von Pflanzen wurde weder durch eine gesicherte Mykorrhizabeziehung noch durch eine Kulturanleitung ersetzt.
Polen: Vorkommen und Fruktifikationszeit
Verfügbare Daten: Die Checkliste von Wojewoda (2003, S.45) gibt Juni–September sowie historische Fundorte u. a. im Cedyński Park Krajobrazowy, auf dem Chojnik, in der Tatra, bei Mikołajki und im Reservat Starożyn in der Puszcza Augustowska an. Sie nennt Wälder und Buche. Die Monate wurden direkt als 6–9 erfasst; die Saison wurde weder aus den Daten einzelner Aufsammlungen in GRej noch aus einem ausländischen Atlas abgeleitet.
Bestätigungsgrad: In dieser Checkliste ist A. umbrinolutea ein Synonym von A. battarae. Die polnischen Nachweise bestätigen somit die Verwendung des historischen breiten Konzepts. Ihre Übereinstimmung mit dem modernen engen A. battarrae erfordert eine Revision der Belege. Die PTMyk (2025) betont ebenfalls die Notwendigkeit, die Anzahl der Fundorte bei uneinheitlicher Taxonauffassung zu überprüfen. Daraus folgt kein Beweis für das Fehlen in Polen. Die gegenwärtige Häufigkeit wurde nicht aus der ehemaligen Roten Liste R errechnet.
Quellgemäße Reaktion des Fleisches auf Phenol
Testablauf: Aalto (1974, S.94) untersuchte das Fleisch eines trockenen Belegs unter Verwendung einer 2%igen Phenollösung. Nach 1–2 Minuten erfolgte eine Reaktion: anfangs schwaches Violett, danach Nachdunkeln zu einer weinrotbraunen Farbe. In der Datenbank befinden sich zwei geordnete Stufen eines einzelnen Tests; sie wurden weder mit einer natürlichen Verfärbung auf Druck noch mit der Inamyloidie der Sporen verwechselt. Konzentration, trockenes Material und Zeitspanne wurden in der Methodenbeschreibung beibehalten. Die Zeit von 1–2 Minuten wurde nicht eigenmächtig durch den Zeitpunkt 90 Sekunden ersetzt.
Essbarkeit: geprüfte Kette von Quellengrundlagen
Bewertungen der Autoren: Wojewoda (2003) gibt in der früheren weiten Auffassung „Edible“ an. Der tschechische Atlas bezeichnet die Art als essbar, und die SFMU führt A. battarrae unter den Pilzen auf, die wegen Hämolysinen gründliches Kochen erfordern. First Nature rät vom Sammeln ab und verweist auf die geringe Kenntnis über die Essbarkeit. Es handelt sich um Meinungen und ratgebende Ausarbeitungen mit unterschiedlichen Bestimmungsumfängen, nicht um vier unabhängige Sicherheitsexperimente.
Grenze der Bestätigung: In den ausgewerteten Quellenfolgen wurde weder ein primärer Nachweis von Hämolysinen noch eine kontrollierte Verzehrstudie mit Material ermittelt, das dem Epitypus A. battarrae entspricht. Daher wurden weder Sicherheit noch Kochzeiten in Minuten bestätigt. Das Fehlen einer aufgefundenen Arbeit beweist weder Ungiftigkeit, die Unrichtigkeit der Atlasbewertung noch die Nichtexistenz von Studien.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Polska,historyczne konto czeklisty Wojewody 2003,s.45. Stanowiska:Cedynia,Chojnik,Tatry,okoliceMikołajek,rezerwatStarozyn.
Umfang der Auswertung: Vollständiger Text.
Prüfdatum: 19.10.2026.
Einschränkungen: Bestätigt ist die Tatsache der Veröffentlichung polnischer Nachweise unter dem früheren Namen. Dies ist kein Beweis für die Zugehörigkeit jeder Aufsammlung zum engen modernen A.battarrae. Ein Nichtvorkommen wurde nicht aus taxonomischer Unsicherheit abgeleitet.
Vorkommensüberprüfung — Umfang und Einschränkungen
Material: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A.battarae.
Leseumfang: Quellenauszüge.
Ein Quellenauszug wurde gelesen; Volltext und Methoden wurden nicht überprüft.
Überprüfungsdatum: 21.10.2026.
Einschränkungen: Die ursprüngliche Bestimmung und der Begriffsumfang wurden beibehalten. Es wurde weder eine Neubegutachtung von Belegen noch das Lesen aller von der Quelle zitierten Publikationen deklariert.
Bearbeitungsumfang
Vor dem Abschluss erfordert der Datensatz eine Ergänzung oder Abrechnung.
- Die Suche nach Vorkommensregionen erfordert eine Abrechnung.
Rechtsgrundlage und Bewertungsumfang
Wichtigste Inhaltsstoffe und ihre Wirkung
Ökologische Untersuchungen
Quellendokumentation
Quellenfeststellungen: In der Studie von Tervonen et al. (2019) wurde Amanita battarrae in der Tabelle der ektomykorrhizalen Pilze mit den Werten LC/0/1/1 in den Spalten IUCN/Grazed/Aband/All aufgeführt. Untersucht wurden 36 Standorte in Mittelfinnland: 18 beweidete und 18 aufgelassene, bei drei Besuchen auf drei Probeflächen von 10 × 10 m. Die Zeile verzeichnet ein Vorkommen im aufgelassenen Teil; sie gibt weder die landesweite Häufigkeit noch einen konkreten Wirtsbaum oder eine DNA-Verifizierung an.
Lebensraum und Vorkommen
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Fruchtbildung | Quellen |
|---|---|---|---|
| Polen | Sandezer Becken | VI–IX |
|
Quellen
- First Nature, Pat O’Reilly, Amanita battarrae (także [26])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (także [22])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (także [32])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (także [30])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- Nr 26 — materiał, metoda i dokładny wynik źródła
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (także [35])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.