
Ядомы

Патрабуе апрацоўкі

У сырым выглядзе атрутны

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


Amanita battarrae — шапкавы шапкава-ножкавы грыб з падсецыі Vaginatae (паплаўкі). Мае падоўжана-рубчасты край шапкі, характэрныя жаўтлява-бурыя або аліўкава-шэрыя канцэнтрычныя зоны на капялюшыку і белаватую ломкую ножку без кальца з мешкападобнай вольвай пры аснове.
Распазнаванне, асяроддзе пражывання і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
- Вышыня плодавага цела
- Вышыня плодавага цела: 150 mm.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: яйкападобны.
Форма капялюшыка: звонападобны.
Форма капялюшыка: выпуклы.
у спелых пладовых цел: Форма капялюшыка: плоскі.
у маладых пладовых цел: Форма капялюшыка: паўшарападобны. - Рэльеф паверхні капялюшыка
- Рэльеф паверхні капялюшыка: гладкі.
- Покрыва капялюшыка
- Покрыва капялюшыка: голая.
- Бляск паверхні капялюшыка
- Бляск паверхні капялюшыка: бліскучы.
- Ліпкасць і слізістасць капялюшыка
- Ліпкасць і слізістасць капялюшыка: ліпкі.
- Колер капялюшыка
- Колер капялюшыка: шэры.
Колер капялюшыка: шэра-карычневы.
Колер капялюшыка: жоўта-аліўкавы. - Абрыс краю капялюшыка
- Абрыс краю капялюшыка: роўны.
- Рэльеф паверхні краю капялюшыка
- Рэльеф паверхні краю капялюшыка: баразнаваты.
- Трэшчыны і разрывы краю
- Трэшчыны і разрывы краю: без расколін.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 40–120 mm.
- Цэнтр капялюшыка
- Цэнтр капялюшыка: з выразным гарбком.
Цэнтр капялюшыка: з выразным гарбком.
Цэнтр капялюшыка: Уціснуты. - Аддзяляльнасць скуркі капялюшыка
- Аддзяляльнасць скуркі капялюшыка: часткова здымаецца.
Аддзяляльнасць скуркі капялюшыка: часткова здымаецца (да паловы). - Наяўнасць рэшткаў пакрывала на шапцы
- Наяўнасць рэшткаў пакрывала на шапцы: адсутны.
- Занальнасць афарбоўкі капялюшыка
- Занальнасць афарбоўкі капялюшыка: канцэнтрычны (выразныя зоны).
Занальнасць афарбоўкі капялюшыка: канцэнтрычны.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: пласцінкі.
Пласцінкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: прырослы да ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: прырослы да ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі).
- Колер гіменафора
- Колер гіменафора: крэмавы.
Колер гіменафора: белаватая.
Колер гіменафора: крэмава-белы.
Колер гіменафора: белы. - Макраскапічная будова вольнага краю пласцінак
- Макраскапічная будова вольнага краю пласцінак: суцэльныя, з гладкім абрысам.
Макраскапічная будова вольнага краю пласцінак: шматкаватая.
у маладых пладовых цел: Макраскапічная будова вольнага краю пласцінак: шматкаватая.
у старых пладовых цел: Макраскапічная будова вольнага краю пласцінак: зубчастае або пілаватае. - Натуральная афарбоўка краю пласцінкі
- Натуральная афарбоўка краю пласцінкі: белы.
- Адлегласць паміж пласцінкамі
- Адлегласць паміж пласцінкамі: блізка размешчаныя.
Адлегласць паміж пласцінкамі: рэдка размешчаныя.
Адлегласць паміж пласцінкамі: даволі рэдка размешчаныя.
Адлегласць паміж пласцінкамі: блізка размешчаныя.
Адлегласць паміж пласцінкамі: густа размешчаныя. - Таўшчыня пласцінак
- Таўшчыня пласцінак: тоўсты.
- Вышыня пласцінак
- Вышыня пласцінак: да 7 mm.
- Катэгорыя шырыні пласцінак
- Катэгорыя шырыні пласцінак: шырокае.
- Наяўнасць кароткіх пласцінак
- Наяўнасць кароткіх пласцінак: наяўны.
Ножка і аснова
- Становішча ножкі
- Становішча ножкі: цэнтральны.
- Форма ножкі
- Форма ножкі: цыліндрычны.
Форма ножкі: звужаецца дагары.
Форма ножкі: булавападобны. - Колер ножкі
- у верхняй частцы ножкі: Колер ножкі: белаватая.
Колер ножкі: белы. - Рэльеф паверхні ножкі
- у верхняй частцы ножкі: Рэльеф паверхні ножкі: баразнаваты.
- Покрыва паверхні ножкі
- Покрыва паверхні ножкі: лускаватая.
- Колер арнаментацыі ножкі
- Колер арнаментацыі ножкі: шэра-карычневы.
- Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
Унутраная будова ножкі: пусты ўнутры. - Даўжыня ножкі
- Даўжыня ножкі: 50–200 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 5–20 mm.
- Вольва
- Вольва: наяўны.
Вольва: наяўны.
Вольва: наяўны.
Вольва: наяўны.
Вольва: наяўны.
Кольца
- Наяўнасць кольца
- Наяўнасць кольца: без кольца.
Наяўнасць кольца: без кольца.
Наяўнасць кольца: без кольца.
Наяўнасць кольца: без кольца.
Пакрывала каля асновы
- Будова покрыва каля асновы ножкі
- Будова покрыва каля асновы ножкі: мяшкападобная.
Будова покрыва каля асновы ножкі: мяшкападобная.
Будова покрыва каля асновы ножкі: мяшкападобная.
- Колер похвы і пакрывала ў аснове ножкі
- Колер похвы і пакрывала ў аснове ножкі: белы (элемент покрыва каля асновы ножкі: вольва).
Колер похвы і пакрывала ў аснове ножкі: белы (элемент покрыва каля асновы ножкі: вольва).
Колер похвы і пакрывала ў аснове ножкі: белы (элемент покрыва каля асновы ножкі: вольва).
Колер похвы і пакрывала ў аснове ножкі: белы (элемент покрыва каля асновы ножкі: вольва). - Каржакаватасць ножкі
- Каржакаватасць ножкі: крэпкі.
- Матэрыял похвы і пакрывала ў аснове ножкі
- Матэрыял похвы і пакрывала ў аснове ножкі: перапончаты (элемент покрыва каля асновы ножкі: вольва).
Мякаць
- Колер мякаці
- Колер мякаці: белы.
Колер мякаці: белаватая (мякаць ножкі). - Смак мякаці
- Смак мякаці: даўкі.
Смак мякаці: слабы. - Устойлівасць мякаці да пералому або разрыву
- Устойлівасць мякаці да пералому або разрыву: крохкі.
- Тып кансістэнцыі мякаці
- Тып кансістэнцыі мякаці: мясісты (мякаць капялюшыка).
- Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: без змены колеру.
- Пах мякаці
- Пах мякаці: прыемны (мякаць).
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: хвойны лес.
Месцапражыванне: змешаны лес.
Месцапражыванне: лісцевы лес. - Субстрат
- Субстрат: глеба.
Субстрат: падсцілка. - Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: рассеяныя групы.
Характар росту пладовых цел: невялікімі групамі. - Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да верасня.
- Арэал распаўсюджання
- Арэал распаўсюджання: пацверджана.
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
- Спажыванне ў сырым выглядзе
- У сырым выглядзе атрутны
Права
- Ахова
- У Польшчы від не падлягае відавой ахове.
- Гандаль
- У Польшчы від не дапушчаны да гандлю або вытворчасці грыбной прадукцыі.
З чым можна паблытаць
Jerzy Opioła · CC BY-SA 4.0
Zmniejszono do maksymalnie 1600 pikseli i zapisano jako JPEG; zachowano proporcje, pełny kadr i barwy. Oryginalny plik źródłowy zachowano.
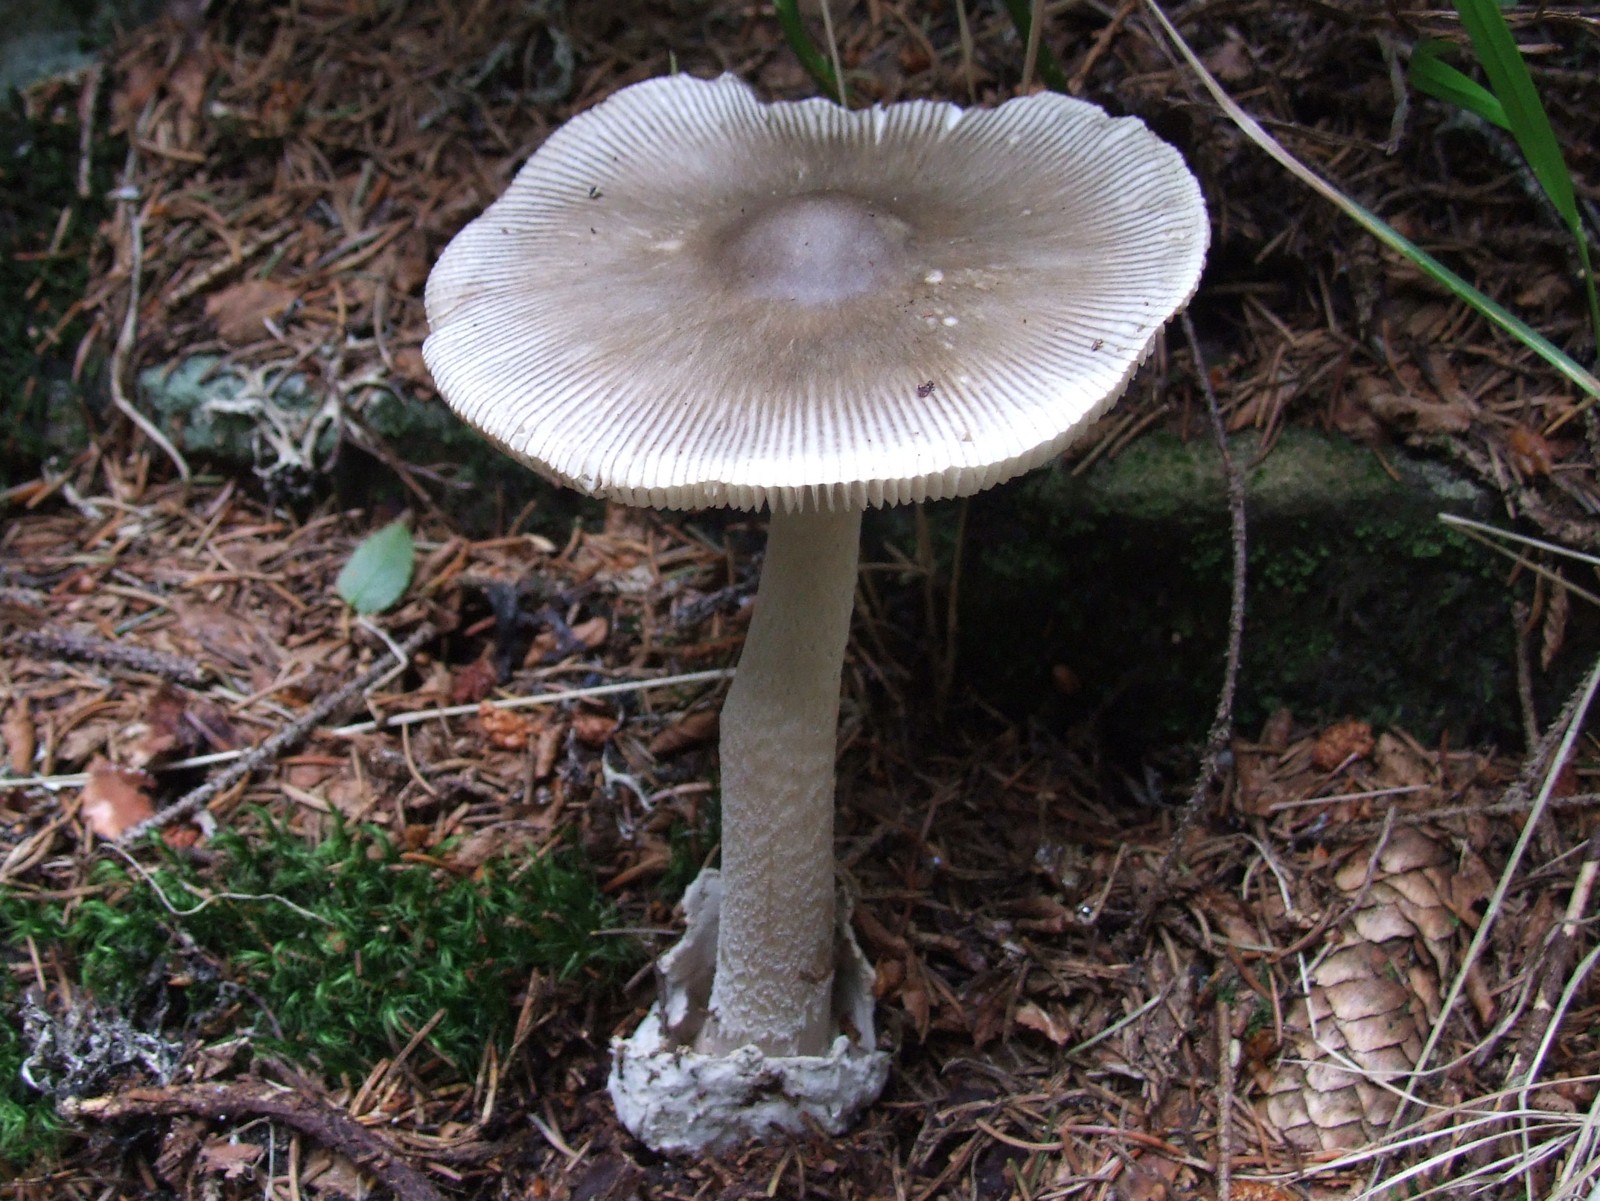
Крыніца фотаздымка · CC BY-SA 4.0Amanita vaginata
Найважнейшыя адрозненні
Мухамор шэры (Amanita vaginata) адрозніваецца ад мухамора аліўкавага шапкай аднастайнага адцення без канцэнтрычнай занальнасці і гладкай белай ножкай без цямнейшых лускавінак.
Jerzy Opioła · CC BY-SA 3.0
Wersja JPEG o szerokości 1280 px przygotowana przez Wikimedia Commons; bez dodatkowych lokalnych zmian.
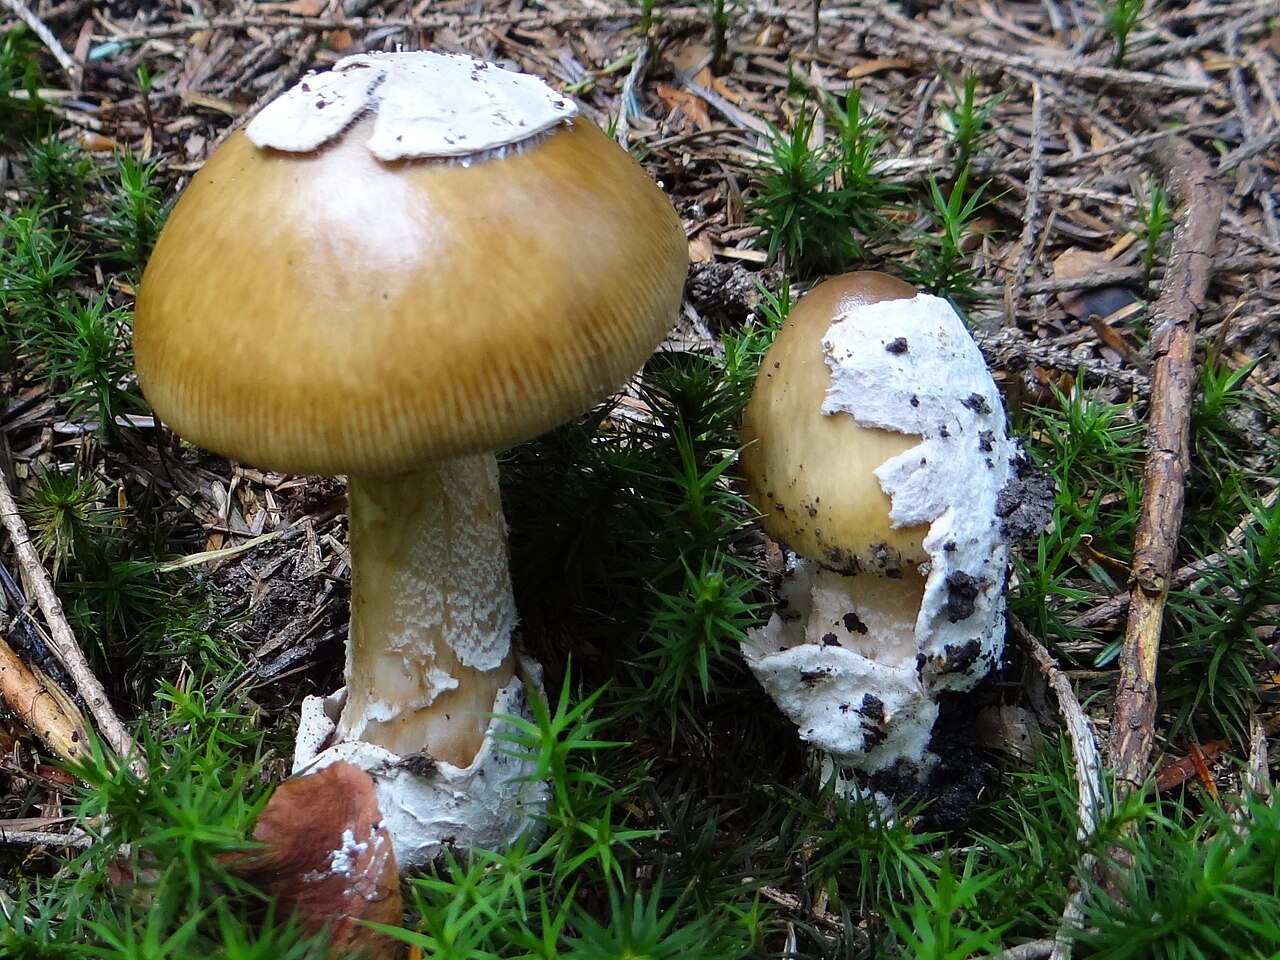
Крыніца фотаздымка · CC BY-SA 3.0Amanita submembranacea
Найважнейшыя адрозненні
Мухамор карычнева-аліўкавы (Amanita submembranacea) утварае шапкі, часцей пакрытыя буйнымі кавалкамі пакрывала, а яго вольва каля асновы ножкі выразна шэрае з унутранага боку.
Amanita fulva
Найважнейшыя адрозненні
Мухамор іржава-карычневы (Amanita fulva) адрозніваецца цёплай, жаўтавата-аранжавай ці лісіна-карычневай афарбоўкай шапкі, белымі пласцінкамі з нязменным краем і гладкай ножкай.
FAQ
Ці з'яўляецца гэты грыб атрутным?
У сырым выглядзе так, бо мае гемалізіны. Пасля поўнага адварвання грыб бяспечны.
Ці ёсць у грыба кольца на ножцы?
Не, у гэтага віду, як і ў іншых паплаўкоў, кольца на ножцы цалкам адсутнічае.
Дзе часцей за ўсё расце від?
У хваёвых і мяшаных лясах на кіслых або імшыстых глебах каля елак і бяроз.
Які смак мае прыгатаваны грыб?
Ён мае вельмі далікатны, саладкавы і прыемны арэхава-грыбны прысмак.
Колькі хвілін трэба адварваць грыб?
Не менш за 15–20 хвілін, абавязкова зліваючы ваду перад спажываннем.
У які сезон плоданасіць грыб?
Асноўны перыяд плоданашэння працягваецца з сярэдзіны ліпеня па кастрычнік.
Чаму грыб атрымаў такую назву?
Ён названы ў гонар італьянскага святара і міколага Джавані Батары.
Ці выкарыстоўваецца від у рамёствах?
Яго выкарыстоўвалі як прыродны фарбавальнік для атрымання аліўкавых тонаў.
Якога колеру капялюшык грыба?
Шаўкавісты, жаўтлява-буры або аліўкава-шэры з цямнейшым цэнтрам.
Ці падыходзіць грыб для сушкі?
Не рэкамендуецца сушыць без тэрмічнай апрацоўкі з-за далікатнасці і таксінаў.
Аматар
Назвы і гісторыя
- Obowiązująca nazwa taksonomiczna
- Amanita battarrae
- Pozostałe nazwy
- muchomor wielkopochwowy
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: белы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: шарападобны. Форма споры: шарападобны. Форма споры: шарападобны. Форма споры: шарападобны. Форма споры: амаль шарападобны. Форма споры: эліпсоідны (шырокі). Форма споры: шарападобны (амаль). Форма споры: эліпсоідны (шырокі). Форма споры: эліпсоідны (зрэдку). Форма споры: шарападобны (зрэдку).
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі. Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 9–17,7 µm, шырыня 7,2–15,6 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Дослед з фенолам
- Матэрыял
- Мякаць пладовага цела
- Рэактыў
- фенол
- Выкананне
- У апісанай спробе фенол ужываўся да пазначанага матэрыялу.
- Умовы і недахопы крыніцы
У крыніцы не пазначаны: падрыхтоўка ўзору, канцэнтрацыя фенолу, колькасць рэактыву, тэмпература, час счытвання, падрабязны спосаб нанясення рэактыву.
Назіранне / вынік
- Вынік з крыніцы
- У мякаці пасля прымянення фенолу атрымалі колер, апісаны ў крыніцы як «фіялетавы».
- Вынік з крыніцы
- У мякаці пасля прымянення фенолу атрымалі колер, апісаны ў крыніцы як «вінавата-чырвона-карычневы».
Экалогія і распаўсюджанне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: бяроза.
Лісцевыя дрэвы ў наваколлі: дуб.
Лісцевыя дрэвы ў наваколлі: бук.
Лісцевыя дрэвы ў наваколлі: граб.
Лісцевыя дрэвы ў наваколлі: ліпа. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: елка.
Хвойныя дрэвы ў наваколлі: піхта.
Хвойныя дрэвы ў наваколлі: сасна. - Тып жыўлення
- Тып жыўлення: эктамікарызны.
Некулінарнае прымяненне
У народнай практыцы альпійскіх і карпацкіх супольнасцей пладовыя целы гэтага віду часам знаходзілі прымяненне як натуральны фарбавальнік для воўны. Пры спалучэнні мякаці капялюшыка з квасцамі атрымліваліся прыглушаныя шэра-аліўкавыя і жаўтлява-карычневыя адценні пражы, якія выкарыстоўваліся ў традыцыйным ткацтве. Акрамя гэтага, у батанічнай і прыродазнаўчай адукацыі высушаныя пладовыя целы і споравыя адбіткі гэтага грыба рэгулярна ўжываюцца як наглядныя экспанаты для дэманстрацыі мікалагічнай разнастайнасці і анатоміі бясплёнкавых паплаўкоў. У сучасным мастацтве і макрафатаграфіі від карыстаецца папулярнасцю дзякуючы геаметрычна выверанаму рубчастаму краю капялюшыка.
Гісторыя і культура
Грыб названы ў гонар вядомага італьянскага батаніка і міколага XVIII стагоддзя Джавані Антоніа Батары, які зрабіў значны ўнёсак у сістэматыку грыбоў Італіі. У еўрапейскай мікалагічнай літаратуры гэты від доўгі час фігураваў у межах складанага комплексу Amanita vaginata, што выклікала шматлікія спрэчкі сярод даследчыкаў класічнай эпохі. У народным фальклоры Альпійскага рэгіёна і Татраў з-за адсутнасці кольца на ножцы і наяўнасці мешкападобнай вольвы грыб асацыяваўся з містычнымі вобразамі лясных духаў і пустэльнікаў. У старых нямецкіх і італьянскіх паляўнічых легендах паплаўкі згадваліся як знак надыходу сапраўднай восені і пераходу прыроды ў стан спакою.
Ядомасць і бяспека
Гэты від адносіцца да ўмоўна-ядомых грыбоў, якія патрабуюць абавязковай працяглай цеплавой апрацоўкі перад ужываннем. У сырым выглядзе грыб змяшчае тэрмалабільныя таксіны, здольныя выклікаць сур'ёзныя страўнікава-кішачныя разлады. Абавязковай умовай бяспекі з'яўляецца папярэдняе адварванне на працягу не менш за дваццаць хвілін са зліваннем адвару. Мякаць пасля правільнага адварвання мае далікатную тэкстуру і мяккі саладкавы грыбны смак. У краінах Цэнтральнай і Паўднёвай Еўропы, у прыватнасці ў Італіі і Францыі, дасведчаныя аматары высока цэняць прадстаўнікоў роду за выдатныя смакавыя якасці, тады як ва Усходняй Еўропе традыцыя іх спажывання развіта слаба з-за павышанай насцярожанасці насельніцтва і строгіх патрабаванняў да апрацоўкі.
Асяроддзе пражывання і распаўсюджанне
Amanita battarrae сустракаецца ў лісцевых і мяшаных лясах умеранага пояса Еўропы і Заходняй Азіі. Сучасныя еўрапейскія даследаванні віду ў вузкім сэнсе (sensu stricto) паказваюць яго сувязь пераважна з лісцевымі дрэвамі — букам, дубам і бярозай у перадгорных і горных раёнах, тады як ранейшыя ўяўленні аб перавазе хвойных біятопаў часта тычыліся іншых блізкіх таксонаў комплексу, хоць асобныя знаходкі каля елкі, піхты ці хвоі цалкам не выключаюцца. Грыб аддае перавагу кіслым, тарфяністым або пясчаным глебам з тоўстым слоем імхоў і ападу, часта трапляецца ўздоўж вільготных узлескаў, парослых мохам лагчын і на высакагорных палянах. У Паўночнай і Цэнтральнай Еўропе сезон плоданашэння пачынаецца ў сярэдзіне ліпеня і працягваецца да кастрычніка, дасягаючы піка ў канцы лета. У паўднёвых рэгіёнах арэала, такіх як Міжземнамор'е або Карпаты, перыяд вегетацыі ссунуты да верасня і лістапада, дзе грыб часцей расце ў букавых і мяшаных лясных масівах на вапняковых або сугліністых глебах.
Крыніцы
- FIRST-NATURE
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Kraj źródła: CZ
Česká mykologická společnost,Karel Tejkal,Amanita battarrae · ČMS:Jedlá houba. Ацэнка атласа ў чэшскім шырокім разуменні A.battarrae/umbrinolutea; не вынік харчовага эксперыменту.
- Спажыванне ў сырым выглядзе
- Атрутны
Materiał: surowy
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; зорачка азначае аўтарскае ўказанне на гемалізіны. Ацэнка другаснага даследавання,без ідэнтыфікаванага відавога аналізу складу.
- Ядомасць
- Атрутны
Materiał: po niedostatecznej obróbce
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:Champignons toxiques crus ou peu cuits,Amanite brun-jaune(Amanita battarrae)*; зорачка азначае аўтарскае ўказанне на гемалізіны. Ацэнка другаснага даследавання,без ідэнтыфікаванага відавога аналізу складу.
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
SFMU/V.Danel,Champignons,résumé toxicologique,XII2019 · SFMU:La cuisson permet la destruction des substances toxiques. Патрабаванне апрацоўкі паводле крыніцы,без непрыведзенага часу,тэмпературы або гарантыі бяспекі.
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Amanita battarrae
Навуковыя назвы і таксанамія
Правільная навуковая назва таксона — Amanita battarrae (Boud.) Bon, класіфікаваная ў рангу віду ў межах сямейства мухаморавых (Amanitaceae). Яна была ўтворана на аснове базаніма Amanitopsis battarrae Boud. 1902 года.
Навуковыя назвы і таксанамія
Сучасная філагенетычная рэвізія секцыі Vaginatae, праведзеная групай Варгі ў 2024 годзе, раздзяліла Amanita battarrae і Amanita umbrinolutea як два незалежныя віды. У гэтай трактоўцы назвы Amanita pachyvolvata і Amanita magnivolvata былі прызнаныя сінонімамі A. battarrae.
Навуковыя назвы і таксанамія
Рэвізія гістарычных гербарных збораў у Цэнтральнай Еўропе паказала, што значная частка ранейшых калекцый, вызначаных як A. battarrae, насамрэч прадстаўляла A. umbrinolutea, тады як матэрыялы, апісаныя пад назвай A. pachyvolvata, уяўлялі сабой сумесь таксонаў, якая ўключала ў тым ліку A. battarrae, A. spadicea і A. supravolvata.
Навуковыя назвы і таксанамія
Таксанамічная гісторыя віду ахоплівае паслядоўныя змены рангу: ад разгляду ў якасці разнавіднасці праз узняцце да рангу віду Рыелем у 1907 годзе да фармальнай камбінацыі ў родзе Amanita, апублікаванай Марселем Бонам у 1985 годзе.
Матэрыял і метады навуковых даследаванняў
У анатамічных даследаваннях азіяцкага матэрыялу выкарыстоўвалі светлавую мікраскапію ў рэактыве Мельцэра і сканавальную электронную мікраскапію пры павелічэннях ад 3000× да 15000×.
Матэрыял і метады навуковых даследаванняў
Рэвізія еўрапейскай секцыі Vaginatae 2024 года грунтавалася на секвенаванні чатырох локусаў ДНК (ITS, LSU, RPB1, TEF1-α) і мікраскапічным аналізе тканак вольвы і памераў спор у выбарках, якія налічвалі па 30 вымярэнняў на асобнік.
- Zakres ujęcia taksonomicznego
Source-reported Amanita battarrae concepts: current IF103034 broad registry view also redirects A.umbrinolutea IF355878 to battarrae, while Varga2024 separates them and synonymises pachyvolvata/magnivolvata with narrow battarrae. Independent Czech/Polish/British atlas and Kumar-Atri2020 Indian materials retain only their original identifications; no global congruence or reidentification is asserted.
[18] [2] [19]
Экалогія і распаўсюджанне
- Мікарызныя партнёры
- Індыя, меркаваная мікарызная сувязь паводле крыніцы, няма дакументальна пацверджанай мікарызы на падставе даследавання каранёў, абмежавана назіраннем з крыніцы: Мікарызныя партнёры: Shorea robusta. [29]
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
- Даўжыня стэрыгмы базідыі
- Даўжыня стэрыгмы базідыі: да 8,2 µm. [29]
Даўжыня стэрыгмы базідыі: да 10 µm. [34] - Колькасць спор на базідыі
- Колькасць спор на базідыі складае 4. [17]
Колькасць спор на базідыі складае 1. [34]
Колькасць спор на базідыі складае 4. [21]
Колькасць спор на базідыі складае 2. [34]
Колькасць спор на базідыі складае 4. [34]
Колькасць спор на базідыі складае 2. [21]
Колькасць спор на базідыі складае 3. [34]
Пражкі
Гіменіяльныя цыстыды
- Наяўнасць цыстыд у гіменіі
- Наяўнасць цыстыд у гіменіі: адсутны. [29]
Астатнія лабараторныя прыкметы
- Даўжыня клеткі краю пласцінкі
- Даўжыня клеткі краю пласцінкі: 10–60 µm. [21]
- Форма іншых клетак ляза пласцінкі
- Форма іншых клетак ляза пласцінкі: грушападобныя. [21]
- Шырыня клеткі краю пласцінкі
- Шырыня клеткі краю пласцінкі: 15–30 µm. [21]
- Фертыльнасць краю пласцінак
- Фертыльнасць краю пласцінак: стэрыльная. [21]
Фертыльнасць краю пласцінак: плоднае. [29] - Прысутнасць пілеацысцід
- Прысутнасць пілеацысцід: адсутны. [29]
- Даўжыня клеткі ўнутранай трамы ножкі
- Даўжыня клеткі ўнутранай трамы ножкі: да 164 µm. [34]
- Шырыня клеткі ўнутранай трамы ножкі
- Шырыня клеткі ўнутранай трамы ножкі: да 47 µm. [34]
- Шырыня гіфы ўнутранай трамы ножкі
- Шырыня гіфы ўнутранай трамы ножкі: 3,2–12,5 µm. [34]
Шырыня гіфы ўнутранай трамы ножкі: да 32 µm. [29] - Шырыня гіфы агульнага пакрывала
- Шырыня гіфы агульнага пакрывала: 4–10 µm. [21]
Скурка шапкі
- Размяшчэнне гіфаў скуркі капялюшыка
- Размяшчэнне гіфаў скуркі капялюшыка: пераплеценыя. [34]
Размяшчэнне гіфаў скуркі капялюшыка: пераплеценыя. [29] - Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: 1,8–8 µm. [34]
Шырыня элементаў скуркі капялюшыка: да 6,5 µm. [29] - Галінаванне гіфы скуркі
- Галінаванне гіфы скуркі: разгалінаваны. [34]
- Перагародкі гіф скуркі
- Перагародкі гіф скуркі: з перагародкамі. [29]
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны. [29]
Споры
- Сярэднія суадносіны даўжыні і шырыні споры
- Сярэднія суадносіны даўжыні і шырыні споры: 1,2 (сярэдняе значэнне). [21]
Сярэднія суадносіны даўжыні і шырыні споры: 1,19 (сярэдняе значэнне). [34] - Наяўнасць прыдатка рубчыка базідыяспоры
- Наяўнасць прыдатка рубчыка базідыяспоры: наяўны. [34]
Наяўнасць прыдатка рубчыка базідыяспоры: наяўны. [29] - Размяшчэнне атожылка рубчыка базідыяспоры
- Размяшчэнне атожылка рубчыка базідыяспоры: амаль бакавы. [34]
- Форма адростка рубчыка базідыяспоры
- Форма адростка рубчыка базідыяспоры: цыліндрычны. [34]
- Даўжыня атожылка рубчыка базідыяспоры
- Даўжыня атожылка рубчыка базідыяспоры: да 1,6 µm. [29]
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: гіялінавы. [34]
- Змесціва споры
- Змесціва споры: зярністая. [34]
- Кроплі ўнутры споры
- Кроплі ўнутры споры: наяўны. [34]
- Даўжыня споры
- Даўжыня споры: 9–17,5 µm. [34]
Даўжыня споры: 10–14,5 µm. [21]
Даўжыня споры: 9–17,7 µm. [34]
Даўжыня споры: 10–12 µm. [17] - Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 1,03–1,52. [34]
Суадносіны даўжыні і шырыні споры: 1,03–1,5. [34]
Суадносіны даўжыні і шырыні споры: 1–1,1. [17] - Форма споры
- Форма споры: шарападобны. [17]
Форма споры: шарападобны. [11]
Форма споры: шарападобны. [1]
Форма споры: шарападобны. [15]
Форма споры: амаль шарападобны. [15]
Форма споры: эліпсоідны (шырокі). [21]
Форма споры: шарападобны (амаль). [34]
Форма споры: эліпсоідны (шырокі). [34]
Форма споры: эліпсоідны (зрэдку). [34]
Форма споры: шарападобны (зрэдку). [34] - Паверхня споры
- Паверхня споры: гладкі. [17]
Паверхня споры: гладкі. [11]
Паверхня споры: гладкі. [1]
Паверхня споры: гладкі. [34]
Трама гіменафора
- Тып трамы гіменафора
- Тып трамы гіменафора: білатэральная. [17]
Тып трамы гіменафора: білатэральная. [34] - Шырыня гіф трамы
- Шырыня гіф трамы: 3,2–7,5 µm. [34]
- Даўжыня ўздутай клеткі трамы гіменафора
- Даўжыня ўздутай клеткі трамы гіменафора: да 65 µm. [34]
- Шырыня ўздутай клеткі трамы гіменафора
- Шырыня ўздутай клеткі трамы гіменафора: да 21 µm. [34]
Матэрыял і метады даследаванняў
Проба з хімічным рэактывам — матэрыял і абмежаванні
Матэрыял: Мякаць сухога экзэмпляра галатыпу A.magnivolvata,Aalto 1600(H),Фінляндыя.
Ахоп прачытання: Поўны тэкст.
Абмежаванні: Канцэнтрацыя 2%,сухі матэрыял і 1–2-хвілінны час застаюцца відавочна ў зыходным метадзе; фазавы час кожнай афарбоўкі не ўдакладнены. Інтэнсіўнасць пачатковага фіялетавага слабая; бягучая мадэль мае толькі intense. Асобны кваліфікатар заяўлены да пашырэння.
Мікраскапічныя даныя — крыніца і абмежаванні
Матэрыял: Tulloss 1994,даследаванне тыпу Aalto 1600(H),40 спор з 1 пладовага цела і 1 калекцыі;Qсярэдняе 1.19,уласны вынік аўтара.
Ахоп прачытання: Поўны тэкст.
Абмежаванні: Сярэдняе з'яўляецца асобным вынікам, а не мяжой памеру ці значэннем для ўсіх папуляцый.
Мікраскапічныя даныя — крыніца і абмежаванні
Матэрыял: Галатып Aalto 1600(H),значэнне сярэдніх суадносін даўжыні да шырыні, прыведзенае Aalto 1974.
Ахоп прачытання: Поўны тэкст.
Абмежаванні: Сярэдняе з'яўляецца асобным вынікам, а не мяжой памеру ці значэннем для ўсіх папуляцый.
- Вынікі, пададзеныя ў крыніцах — Колькасць спор на базідыі
- Liczba zarodników na jednej podstawce wynosi 3. [34]
Liczba zarodników na jednej podstawce wynosi 2. [34] [21]
Liczba zarodników na jednej podstawce wynosi 1. [34]
Liczba zarodników na jednej podstawce wynosi 4. [21] [34] [17] - Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- 10–14,5 µm [21]
9,8–15 µm (skrajnie 9–17,7 µm) [34]
10–12 µm [17]
10–16,5 µm (skrajnie 9–17,5 µm) [34] - Вынікі, пададзеныя ў крыніцах — Суадносіны даўжыні і шырыні споры
- Materiał badania: Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]. 1–1,1 [17]
1,07–1,36 (skrajnie 1,03–1,5) [34]
1,06–1,36 (skrajnie 1,03–1,52) [34] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- 8,5–12,8 µm (skrajnie do 14,5 µm) [34]
9–12 µm [17]
8–11,5 µm [21]
8,4–12,2 µm (skrajnie 7,2–15,6 µm) [34] - Вынікі, пададзеныя ў крыніцах — Шырыня гіфы ўнутранай трамы ножкі
- Strzępka wewnętrznej tramy trzonu może mieć szerokość od 3,2 do 12,5 mikrometra. [34]
Strzępka wewnętrznej tramy trzonu może mieć szerokość do 32 mikrometrów. [17]
Metody i zapisy źródłowe — Tulloss (1994): odczyt autorskiego konta typu A.magnivolvata w Amanitaceae/Dikarya. Holotyp Aalto1600(H): 40 zarodników z jednego owocnika i jednej kolekcji. Pełny PDF artykułu w BHL niedostępny (HTTP403); nie deklarowano odczytu całej pracy.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Tulloss:tightly interwoven pileipellis hyphae; stopień zachowany źródłowo.” [34]
Długość sterygmy podstawki — zapis źródłowy: „Tulloss:sterigmata up to10.0×5.0µm; długość do10µm, szerokości5µm nie podszyto pod długość.” [34]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Tulloss:holotyp około50%2-sterygmowych,25%4-sterygmowych,25%1-sterygmowych,rzadko3-sterygmowe. Udziały są w dokumentacji; rzadko dotyczy tylko3.” [34]
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral; odrębna możliwość rzadko lateralna zachowana w dokumentacji i zgłoszeniu modelu.” [34]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus sublateral to rarely lateral,cylindric. Obecność dziobka odrębna od jego położenia i kształtu.” [34]
Kształt wyrostka wnęki bazydiospory — zapis źródłowy: „Tulloss:apiculus cylindric; kształt niezależny od jego położenia.” [34]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:from type study,[40/1/1],(9.0–)10.0–16.5(–17.5)×8.5–12.8(–14.5)µm,Q=(1.03–)1.07–1.36(–1.50);podstawki52–82×12.5–19µm.” [34]
Typ tramy hymenoforu — zapis źródłowy: „Tulloss:bilateral.” [34]
Szerokość strzępek tramy — zapis źródłowy: „Tulloss:filamentous hyphae3.2–7.5µm wide.” [34]
Długość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm. Lokalizacja interkalarna zachowana w identyfikacji badanego celu.” [34]
Szerokość rozdętej komórki tramy hymenoforu — zapis źródłowy: „Tulloss:swollen intercalary segments including branched elements,up to65×21µm.” [34]
Szerokość elementów skórki — zapis źródłowy: „Tulloss:filamentous undifferentiated pileipellis hyphae1.8–8.0µm wide.” [34]
Rozgałęzienie strzępki skórki — zapis źródłowy: „Tulloss:pileipellis hyphae branching.” [34]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Tulloss:hyaline,colorless.” [34]
Zawartość zarodnika — zapis źródłowy: „Tulloss:additional small granules; ziarnistość obok kropli.” [34]
Krople wewnątrz zarodnika — zapis źródłowy: „Tulloss:contents monoguttulate with additional small granules; kropla niezidentyfikowana chemicznie, nie wpisano lipidów.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:subglobose to broadly ellipsoid; wariant niemal kulisty.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:broadly ellipsoid; szerokość obrysu wyłącznie własnej wartości.” [34]
Kształt zarodnika — zapis źródłowy: „Tulloss:occasionally ellipsoid or globose; częstość dotyczy tylko własnego wariantu.” [34]
Powierzchnia zarodnika — zapis źródłowy: „Tulloss:smooth.” [34]
Grubość ściany zarodnika — zapis źródłowy: „Tulloss:thin-walled.” [34]
Długość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm; nie wymiary strzępek skórki trzonu.” [34]
Szerokość komórki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:acrophysalides up to164×47µm.” [34]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Tulloss,stipe context:filamentous undifferentiated hyphae3.2–12.5µm wide.” [34]
Metody i zapisy źródłowe — Kumar i Atri (2020), s.34–35. Indie, Himachal Pradesh, Dhaulakuan, 425m n.p.m., 28.08.2013, J.Kumar, PUN9144, w sąsiedztwie Shorea robusta. Identyfikacja makro- i mikroskopowa autorów, bez ponownego powiązania DNA z europejskim epitypem.
Identyfikacja kropli: nierozstrzygnięta.
Układ strzępek skórki — zapis źródłowy: „Kumar2020:interwoven hyphae.” [17]
Długość wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculus up to1.6µm long.” [17]
Długość sterygmy podstawki — zapis źródłowy: „Kumar2020:sterigmata up to8.2µm long.” [17]
Obecność wyrostka wnęki bazydiospory — zapis źródłowy: „Kumar2020:apiculate,apiculus up to1.6µm long.” [17]
Płodność ostrza blaszek — zapis źródłowy: „Kumar2020:gill edge fertile. Wynik PUN9144,nie sprzeczny wynik dla tego samego typu Aalto1600.” [17]
Obecność cystyd w hymenium — zapis źródłowy: „Kumar2020:cystidia absent; źródłowy brak cystyd hymenialnych w badaniu PUN9144, nie zastępczy wniosek z płodności ostrza.” [17]
Szerokość elementów skórki — zapis źródłowy: „Kumar2020:pileus cuticle hyphae up to6.5µm broad.” [17]
Przegrody strzępki skórki — zapis źródłowy: „Kumar2020:septate hyphae.” [17]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „Kumar2020:pileus cuticle gelatinised with interwoven septate hyphae.” [17]
Obecność pileocystyd — zapis źródłowy: „Kumar2020:pileocystidia absent; wynik dla skórki kapelusza.” [17]
Szerokość strzępki wewnętrznej tramy trzonu — zapis źródłowy: „Kumar2020:stipe context,septate hyaline parallel hyphae up to32µm broad; nie strzępki skórki do12µm.” [17]
Metody i zapisy źródłowe — Exact source material and scope: ["Amanita battarrae sensu Kumar-Atri2020, separately described Indian material, not reidentified under Varga2024", {}, null, null]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Podstawki czterozarodnikowe.” [17]
Długość podstawki; Kształt podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; długość 29–40 µm.” [17]
Szerokość podstawki — zapis źródłowy: „Podstawki 29–40 × 8–12 µm, maczugowate; szerokość 8–12 µm.” [17]
Typ tramy hymenoforu — zapis źródłowy: „Trama rozbieżna; strzępki centralne do 9,8 µm, boczne do 32,6 µm szerokości.” [17]
Długość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; pierwsza oś 10–12 µm.” [17]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = 1–1,1 dla opisanego materiału; źródło nie podaje w tym ustępie liczby zmierzonych zarodników.” [17]
Grubość ściany zarodnika — zapis źródłowy: „Zarodniki cienkościenne.” [17]
Szerokość zarodnika — zapis źródłowy: „Zarodniki 10–12 × 9–12 µm; druga oś 9–12 µm.” [17]
Metody i zapisy źródłowe — Aalto (1974), s.93–96. Trzy owocniki z Herniemi koło Puujärvi, Karjalohja, Finlandia, 1.10.1972. M.Aalto1600(H), holotyp A.magnivolvata. Tożsamość typu wiąże sekwencja MN490645 i rewizja Vargi i współautorów (2024). Innych kolekcji nie przeoznaczono.
Identyfikacja kropli: nierozstrzygnięta.
Liczba zarodników na jednej podstawce — zapis źródłowy: „Aalto1974:tetrasporous,but some observed to be bisporous; nie stworzono wartości3.” [21]
Długość podstawki; Szerokość podstawki; Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Aalto1974,s.94:zarodniki10.0–12.1–14.5×8.0–10.1–11.5µm; wartości środkowe są średnimi, nie granicami. Podstawki50–75×20–25µm.” [21]
Kształt podstawki — zapis źródłowy: „Aalto1974:basidia clavate.” [21]
Długość komórki ostrza blaszki; Szerokość komórki ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal cells10–60×15–30µm.” [21]
Kształt innych komórek ostrza blaszki — zapis źródłowy: „Aalto1974:sterile marginal tissue,cells pyriform; inne komórki ostrza,nie domyślne cystydy.” [21]
Płodność ostrza blaszek — zapis źródłowy: „Aalto1974:textura marginali sterili,sterile marginal tissue.” [21]
Kształt zarodnika — zapis źródłowy: „Aalto1974:broadly ellipsoid; kształt i szerokość obrysu osobno.” [21]
Szerokość strzępki osłony całkowitej — zapis źródłowy: „Aalto1974:pochwa utworzona głównie z długich,wąskich,przeplecionych strzępek4–10µm. Wynik dotyczy pochwy u podstawy trzonu,nie wszystkich warstw osłony.” [21]
Metody i zapisy źródłowe — Tulloss: autorska rewizja łączna A.magnivolvata, [140/6/4], 140 zarodników z sześciu owocników i czterech kolekcji europejskich. Ten zbiór jest oddzielny od 40 zarodników holotypu. Synonimia według Vargi i współautorów (2024) nie oznacza własnego sekwencjonowania okazów.
Identyfikacja kropli: nierozstrzygnięta.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „Tulloss:composite of all material examined[140/6/4],(9.0–)9.8–15.0(–17.7)×(7.2–)8.4–12.2(–15.6)µm,Q=(1.03–)1.06–1.36(–1.52); granice ekstremalne zachowane.” [34]
Metody i zapisy źródłowe — Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37
Metody i zapisy źródłowe — Karel Tejkal/Česká mykologická společnost, Amanita battarrae
Metody i zapisy źródłowe — FIRST-NATURE
Metody i zapisy źródłowe — GruppoMicologicoCastellano, Scheda0121
Назвы і межы вызначэння віду
Польскія назвы: Wojewoda (2003, s.45) выкарыстоўвае назву muchomor oliwkowy для гістарычнага A. battarae, залічваючы да яго A. umbrinolutea. Snowarski дакументуе таксама назву muchomor wielkopochwowy для A. magnivolvata. Апошняя мае альтэрнатыўнае значэнне ў разуменні сінаніміі Vargi і суаўтараў (2024). Не пераносілася назва muchomor dwubarwny: рэкамендацыя PTMyk ад 2025 г. прыпісвае яе да A. umbrinolutea. У прачытанай рэкамендацыі не знойдзена новай адназначнай польскай назвы для вузка зразуметага A. battarrae.
Навуковая назва: Навуковай назвай запісу застаецца Amanita battarrae (Boud.) Bon. Hanss і Moreau (2022) тыпіфікуюць базыёнім Amanitopsis vaginata var. battarrae Boud. (1902), указваючы ў якасці лектатыпа табліцу V, рысунак C Battarry ад 1755 г. і эпітып JMH2021005 = LIP0004501. Публікацыя паведамляе пра збор з-пад старога дуба ў Vouhenans у Францыі ад 11 ліпеня 2021 г. Эпітып стабілізуе значэнне назвы, а не пацвярджае тоеснасць усіх раней так вызначаных экзэмпляраў.
Сучаснае разуменне: Varga і суаўтары (2024) змяшчаюць эпітып A. battarrae, галатып A. magnivolvata Aalto 1600 і эпітып A. pachyvolvata AB11-08-56 у адным кладзе. Яны прызнаюць гэтыя назвы сінонімамі, а A. umbrinolutea — асобным відам. Іх больш раннія венгерскія вызначэнні battarrae аказаліся umbrinolutea; пад назвай pachyvolvata выступала некалькі таксонаў. Таму захавана асобнае паходжанне даных фінскага тыпу, пазнейшай еўрапейскай рэвізіі, польскіх гістарычных сведчанняў і індыйскага PUN 9144.
Фінскі галатып: будова пладовага цела і похвы
Матэрыял: Aalto (1974) апісвае тры пладовыя целы, сабраныя 1 кастрычніка 1972 г. у Herniemi каля Puujärvi, Karjalohja, Фінляндыя. Галатып мае нумар M.Aalto 1600(H). Шапка мела 80–115 мм у дыяметры, ножка 95–125×15–20 мм. Шапка маладых экзэмпляраў была купалападобнай, шэрай з лёгкім аліўкавым адценнем, сухой і бліскучай, з 15-міліметровай барознавай краявой зонай. Аўтарка выразна адзначае, што не назірала цалкам спелых пладовых цел. Ім з гэтай працы не прыпісвалася дарослая пласкаватая форма.
Пакрывала і змены пры высушванні: Похва была вялікай, мяшкападобнай, лямцавай, гладкай з абодвух бакоў, свежай чыста белай; каля 60 мм вышынёй і 5–10 мм таўшчынёй. Пасля дакранання з'яўляліся дробныя іржава-жоўтыя плямы, якія захоўваліся пасля сушкі. Похва раздзіралася на 2–3 лопасці на 4–5 см вышэй за аснову, не распадаючыся на лускавінкі на шапцы. Каля асновы прысутнічалі дзве выразныя закругленыя зморшчыны. Гэтыя даныя захаваны ў дакументацыі; іх памеры не ўносіліся ў памеры кольца ці лусак. Падчас сушкі шапка станавілася скурыста-карычневай, а стрыжань суцэльнай ножкі асядаў, пакідаючы папярочныя палосы. Гэта не лічылася станам унутранай часткі свежага пладовага цела.
Месцазнаходжанне: Пладовыя целы раслі на адлегласці 15–20 см адно ад аднаго ў зацененым лісцевым лесе з ляшчынай, асінай, бярозай пухнатай і бярозай павіслай; паблізу была таксама елка. У падлеску пералічаны крушына, вербы, вольха шэрая і чаромха. Субстратам быў пласт лісця і галінак па-над глінай. Гэта апісанне аднаго фінскага месцазнаходжання. Прысутнасць елкі побач не даказвае яе мікарызы з гэтым відам, а дата 1 кастрычніка не вызначае польскага сезону.
Мікраскапія арыгінальнага матэрыялу Aalto
Споры і базідыі: Aalto (1974) прыводзіць споры шырокаэліпсоідныя, неамілоідныя, даўжынёй 10–14,5 µm і шырынёй 8–11,5 µm. У запісе 10,0–12,1–14,5×8,0–10,1–11,5 µm сярэднія значэнні з'яўляюцца сярэднімі, а не дадатковымі межамі. Сярэднія суадносіны даўжыні і шырыні складаюць 1,2. Базідыі булавападобныя,50–75×20–25 µm, чатырохспоравыя, з назіранымі таксама двухспоравымі. Гэта не было заменена на дыяпазон 2–4, які дапісваў бы не прыведзенае ў гэтай працы значэнне 3.
Край пласцінкі і гіфы вольвы: Стэрыльны край пласцінак утварае выразная белая шматкаватая тканка. Яе клеткі грушападобныя,10–60×15–30 µm, з перавагай большых. Іх не назвалі аўтаматычна хейлацыстыдамі. У вольве пераважалі доўгія пераплеценыя гіфы шырынёй 4–10 µm. Аўтарка не бачыла спражак у гэтым апісанні вольвы. Гэта вынік «не назіраліся», які тычыцца пэўнай тканкі; не доказ адсутнасці спражак ва ўсім пладовым целе.
Даследаванне тыпу і пазнейшая рэвізія Tulloss
Даступ і матэрыял: Прачытаны поўны аўтарскі запіс A. magnivolvata у Amanitaceae/Dikarya, з выразна падзеленымі данымі Tulloss (1994) і пазнейшай рэвізіяй. Арыгінальны 92-старонкавы артыкул у BHL не спампаваны з-за HTTP403. Даныя тыпу маюць пазначэнне[40/1/1]:40 спор з аднаго плодавага цела і адной калекцыі. Агульны збор[140/6/4] уключае 140 спор з шасці пладовых цел і чатырох калекцый. Іх не назвалі незалежнымі вынікамі для двух розных відаў ці дзвюма незалежнымі папуляцыямі тыпу.
Споры: Для тыпу прыведзена(9–)10–16,5(–17,5)×8,5–12,8(–14,5)µm, Q=(1,03–)1,07–1,36(–1,50), сярэдняеQ=1,19. Для агульнага збору:(9–)9,8–15(–17,7)×(7,2–)8,4–12,2(–15,6)µm, Q=(1,03–)1,06–1,36(–1,52). У базе захаваны тыповыя, крайнія межы і адрознасць збораў. Споры гладкія, гіялінавыя, танкасценныя, неамілоідныя; ад амаль шарападобных да шырокаэліпсоідных, часам эліпсоідныя або шарападобныя. Часта маюць крыху сплошчаны адаксіяльны профіль; гіганцкія споры бываюць з гэтага боку ўвагнутымі. Дзюбак сублатэральны, рэдка латэральны, цыліндрычны. Кроплі ў спорах не былі ідэнтыфікаваныя як ліпіды.
Базідыі і спражкі: Базідыі галатыпу мелі 52–82×12,5–19 µm і нязначна патоўшчаныя сценкі да 0,5 µm. Каля 50% былі двухстэрыгмавымі,25% чатырохстэрыгмавымі,25% аднастэрыгмавымі, рэдка трохстэрыгмавымі; стэрыгмы да 10×5 µm. У пазнейшым спелым матэрыяле дамінавалі чатыры стэрыгмы. Спражкі ў аснове базідый былі даволі частымі да частых у галатыпе і больш рэдкімі ў спелым матэрыяле. Іх наяўнасць не супярэчыць выніку Aalto для гіф вольвы: яны датычацца іншай тканкі і іншага счытвання. Частата не пераносілася на іншыя варыянты.
Тканкі: Гіфы скуркі шапкі мелі 1,8–8 µm шырыні, разгаліноўваліся і былі густа пераплеценымі, з суб радыяльным размяшчэннем. У спелага даследаванага плодавага цела скурка мела 30–70 µm і моцна жэлацінізавалася толькі каля паверхні; у стадыі гузіка каля 50 µm і без жэлацінізацыі. Трама пласцінак была білатэральнай; яе гіфы 3,2–7,5 µm, з уздутымі інтэркалярнымі ўчасткамі да 65×21 µm. У мякаці ножкі апісаны гіфы 3,2–12,5 µm і акрафізаліды да 164×47 µm, вузкабулавападобныя, са сценкай каля вяршыні 0,5–1 µm. Іх не паблыталі з гіфамі скуркі ножкі.
Пласты пакрывала: У высушаным гузіку знешняя паверхня пакрывала мела 90 µm таўшчыні, з часткова жэлацінізаванымі пучкамі гіф 2,5–12,8 µm. Унутры яе гіфы мелі 2,8–12,2 µm, а ўздутыя канцавыя клеткі да 96×55 µm; у аснове спелай ножкі клеткі дасягалі 141×63 µm. У пазнейшым матэрыяле лапікі пакрывала на спелай шапцы мелі клеткі да 127×100 µm. Розныя паверхні, часткі і стадыі не аб'ядноўваліся ў адзін безумоўны дыяпазон клеткі ўсёй вольвы. Арыгіналы і адсутныя адрозненні захаваны ў дакументацыі пашырэнняў.
Індыйскі PUN 9144: абсяг і абмежаванні даных
Матэрыял і метад: Kumar і Atri (2020) апісваюць збор PUN 9144 Jitender Kumar з Dhaulakuan у Himachal Pradesh, Індыя,425 м н.у.м.,28 жніўня 2013 г., па суседстве з Shorea robusta. Вызначэнне грунтуецца на макра- і мікраскапіі; не даказана малекулярнай адпаведнасці з эпітыпам Hanss і Moreau. У даследаванні захавана вызначэнне аўтараў, без пераносу даты і экалогіі на Польшчу. Прачытаны метады з першай старонкі, апісанне са с.34 і рысунак 8 са с.35; кантроль выявы старонкі аддзяліў гэты запіс ад апісання Russula nobilis, якое заканчваецца побач.
Вынікі: Скурка шапкі была часткова здымнай да паловы; крыніца не вырашае, ці ідзе гаворка пра радыус, ці пра плошчу. Пададзены дроб запісаны без прыдуманай асновы. Споры 10–12×9–12 µm, Q=1–1,1, з дзюбкам да 1,6 µm; базідыі 29–40×8–12 µm, чатырохспоравыя, са стэрыгмамі да 8,2 µm і без спражак. Край пласцінкі ўрадлівы, цыстыд няма. Гіфы скуркі шапкі пераплеценыя, септаваныя, да 6,5 µm, у жэлацінавай субстанцыі; пілеацыстыд няма. Мякаць ножкі ўтрымлівала паралельныя, гіялінавыя, септаваныя гіфы да 32 µm. Асобная крыніца і матэрыял захаваны таксама там, дзе вынік адрозніваецца ад еўрапейскага тыпу.
Меркаваная мікарыза: Аўтары адзначылі арганічнае злучэнне міцэлію з ніжняй часткі ножкі з каранямі шарэі (sal) і вызначылі сувязь як меркаваную эктамікарызу. У гэтай працы не праводзілася малекулярнага вызначэння каранёў або інакуляцыйнага эксперыменту. Саму блізкасць раслін не замянялі пэўнай мікарызнай сувяззю ці інструкцыяй па вырошчванні.
Польшча: сустракальнасць і тэрмін плоданашэння
Даступныя даныя: Чэк-ліст Wojewoda (2003, с.45) прыводзіць чэрвень–верасень, а таксама гістарычныя месцазнаходжанні, у т.л. у Цэдынскім ландшафтным парку, на Chojnik, у Татрах, каля Mikołajki і ў запаведніку Starożyn у Аўгустоўскай пушчы. Пералічвае лясы і бук. Месяцы запісаны непасрэдна як 6–9; сезон не выводзіўся з дат асобных збораў у GRej або з замежнага атласа.
Узровень пацвярджэння: У гэтым чэк-лісце A. umbrinolutea з'яўляецца сінонімам A. battarae. Польскія знаходкі такім чынам пацвярджаюць ужыванне гістарычнага шырокага паняцця. Іх адпаведнасць сучаснаму вузкаму A. battarrae патрабуе рэвізіі экзэмпляраў. PTMyk (2025) таксама падкрэслівае патрэбу верыфікацыі колькасці месцазнаходжанняў пры неаднастайным разуменні таксона. З гэтага не вынікае доказ адсутнасці ў Польшчы. Сучасная частата сустракальнасці не вылічвалася са старога чырвонага спіса R.
Крынічная рэакцыя мякаці на фенол
Ход тэсту: Aalto (1974, с.94) даследавала мякаць сухога экзэмпляра з выкарыстаннем 2% раствору фенолу. Праз 1–2 хвілін адбывалася рэакцыя: спачатку слабы фіялетавы, затым пацямненне да вінавата-чырвона-карычневага колеру. У базе ёсць два спарадкаваныя этапы аднаго тэсту; іх не сблыталі з натуральнай зменай пасля націскання або з неамілоіднасцю спор. Канцэнтрацыя, сухі матэрыял і часавы дыяпазон захаваны ў апісанні метаду. Час 1–2 хвілін не замяняўся адвольна на пункт 90 секунд.
Ядомасць: правераны ланцужок крынічных падстаў
Ацэнкі аўтараў: Wojewoda (2003) падае ў даўнім шырокім разуменні «Edible». Чэшскі атлас называе від ядомым, а SFMU змяшчае A. battarrae сярод грыбоў, якія патрабуюць стараннага варэння з-за гемалізінаў. First Nature не раіць збіраць, паказваючы на недастатковыя веды аб ядомасці. Гэта меркаванні і даведачныя выданні з рознымі абсягамі вызначэння, а не чатыры незалежныя эксперыменты па бяспецы.
Мяжа пацвярджэння: У прачытаных ланцужках не ўдалося дайсці да першаснага вызначэння гемалізінаў ці кантраляванага даследавання спажывання матэрыялу, які адпавядае эпітыпу A. battarrae. Адсюль не пацверджана бяспека ці час варэння ў хвілінах. Адсутнасць знойдзенай працы не даказвае нетаксічнасці, памылковасці ацэнкі атласа ці неіснавання даследаванняў.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Polska,historyczne konto czeklisty Wojewody 2003,s.45. Stanowiska:Cedynia,Chojnik,Tatry,okoliceMikołajek,rezerwatStarozyn.
Абсяг чытання: Поўны тэкст.
Дата прагляду: 19.10.2026.
Абмежаванні: Пацверджаны факт апублікавання польскіх знаходак пад старой назвай. Гэта не доказ прыналежнасці кожнай калекцыі да вузкага сучаснага A.battarrae. Адсутнасць распаўсюджання не выводзілася з таксанамічнай нявызначанасці.
Верыфікацыя распаўсюджання — абсяг і абмежаванні
Матэрыял: Publikowany zbiór z Kotliny Sądeckiej pod źródłową pisownią A.battarae.
Абсяг чытання: Фрагменты крыніц.
Прачытаны фрагмент крыніцы; поўны тэкст і метады не правяраліся.
Дата прагляду: 21.10.2026.
Абмежаванні: Крынічнае вызначэнне і абсяг паняцця захаваны. Не дэкларавалася новае даследаванне ўзораў або чытанне ўсіх публікацый, цытаваных крыніцай.
Абсяг распрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўрэгулявання.
- Пошук рэгіёнаў распаўсюджвання патрабуе разліку.
Прававая аснова і абсяг ацэнкі
Найважнейшыя рэчывы і іх дзеянне
Экалагічныя даследаванні
Крынічная дакументацыя
Высновы крыніцы: У даследаванні Тэрванен і суаўтараў (2019) Amanita battarrae апынулася ў табліцы эктамікарызных грыбоў са значэннямі LC/0/1/1 у слупках IUCN/Grazed/Aband/All. Даследавалася 36 месцазнаходжанняў у цэнтральнай Фінляндыі: 18 выпасаных і 18 закінутых, падчас трох візітаў на трох дзялянках 10 × 10 м. Радок адзначае знаходжанне ў закінутай частцы; не вызначае агульнанацыянальнай частаты, канкрэтнага дрэва-гаспадара ці верыфікацыі ДНК.
Асяроддзе пражывання і распаўсюджанне
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Утварэнне пладовых цел | Крыніцы |
|---|---|---|---|
| Польшча | Сандэцкая катлавіна | VI–IX |
|
Крыніцы
- First Nature, Pat O’Reilly, Amanita battarrae (także [26])
- VARGA-2024
- retained-51afcc71c7bf0be2
- retained-a424cd95008cb1f3
- Karel Tejkal/Česká mykologická společnost, Amanita battarrae (także [22])
- Minister Środowiska, Dz.U. 2014 poz. 1408, rozporządzenie w sprawie ochrony gatunkowej grzybów
- Minister Zdrowia, Dz.U. 2026 poz. 258, tekst jednolity rozporządzenia dotyczącego grzybów dopuszczonych do obrotu
- FrontiersPlantScience 2023, DOI 10.3389/fpls.2023.1226794
- GruppoMicologicoCastellano, Scheda0121
- Marek Snowarski/GRej, Amanita battarrae (także [32])
- Kumar J., Atri N.S. 2020, Kavaka54:30–37, DOI 10.36460/Kavaka/54/2020/30-37 (także [30])
- NCBITaxonomy1638308
- PTMyk, Rekomendacja4/2025
- Nr 26 — aktualne polskie wykazy prawne 18.10.2026
- Aalto M. 1974, Amanita magnivolvata sp.nova, Karstenia14:93–96; DOI 10.29203/ka.1974.92
- ELI, stan aktu ochrony grzybów DU 2014/1408
- ELI, tekst jednolity wykazu handlu DU 2026/258
- ELI, stan aktu podstawowego wykazu handlu DU 2011/672
- Hanss J-M., Moreau P-A., Une révision des Amanites vaginées en Europe, partie1, BSMF133(1–2): 67–141
- Hanss J-M., Moreau P-A. 2022, Une révision des Amanites vaginées en Europe, partie2, validations et typifications
- Nr 26 — materiał, metoda i dokładny wynik źródła
- SFMU/V.Danel, Champignons, résumé toxicologique, XII 2019
- Snowarski M., Amanita magnivolvata, polska nazwa i występowanie
- Tulloss R.E., Amanita magnivolvata, original type study and measurements (także [35])
- Varga D. et al. 2024, Mycological Progress23:38, DOI 10.1007/s11557-024-01974-0
- Wojewoda W. 2003, Checklist of Polish larger Basidiomycetes, s.45, konto Amanita battarae (pisownia źródła)
- Tervonen K., Oldén A., Halme P. 2019. Ectomycorrhizal fungi in wood-pastures: Communities are determined by trees and soil properties, not by grazing. Agriculture, Ecosystems & Environment 269:13–21. DOI 10.1016/j.agee.2018.09.015. Authors’ Appendix B/Table 1.