
Неїстівний
Установіть місцезнаходження, щоб побачити дані для свого регіону.


Синоборовик клиноногий — це гриб із родини боровикових, що зустрічається в листяних, хвойних і мішаних лісах, а також у парках. Утворює шапинку забарвленням від коричневого до оливково-коричневого та жовті пори. Ніжка буває циліндричною або звуженою до основи, вгорі жовтою, а в нижній частині червоно-коричневою. Характерною ознакою є надзвичайно швидке та сильне посиніння пор і м'якуша після натискання. Раніше вважався їстівним грибом, нині не рекомендується, оскільки дослідження показали кумуляцію миш'яку.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
- Консистенція всього плодового тіла
- Консистенція всього плодового тіла: м’ясистий.
Шапинка
- Форма шапинки
- у молодих плодових тіл: Форма шапинки: напівкулястий.
у зрілих плодових тіл: Форма шапинки: опуклий.
у старих плодових тіл: Форма шапинки: плоский.
у зрілих плодових тіл: Форма шапинки: плоский. - Рельєф поверхні шапинки
- у зрілих плодових тіл: Рельєф поверхні шапинки: гладенький.
- Покрив шапинки
- у молодих плодових тіл: Покрив шапинки: замшева.
Покрив шапинки: шовковиста.
у молодих плодових тіл: Покрив шапинки: борошнистий.
у молодих плодових тіл: Покрив шапинки: повстиста.
у зрілих плодових тіл: Покрив шапинки: гола. - Блиск поверхні шапинки
- у молодих плодових тіл: Блиск поверхні шапинки: матовий.
- Клейкість і слизистість шапинки
- у мокрому стані: Клейкість і слизистість шапинки: липкий.
Клейкість і слизистість шапинки: липкий. - Візерунок розтріскування поверхні
- Візерунок розтріскування поверхні: потріскана, характер тріщин не зазначено.
- Колір шапинки
- Колір шапинки: коричневий.
Колір шапинки: карміновий.
Колір шапинки: темно-коричневий.
Колір шапинки: сіро-зелений.
Колір шапинки: оливковою.
Колір шапинки: оливково-коричневий.
Колір шапинки: рожевий.
Колір шапинки: червоно-коричневий.
Колір шапинки: жовтий.
Колір шапинки: жовто-коричневою.
Колір шапинки: жовтуватий.
Колір шапинки: брудно-темно-коричневий. - Положення краю
- Положення краю: прямий.
у старих плодових тіл: Положення краю: відігнутий догори.
у молодих плодових тіл: Положення краю: загнутий усередину. - Контур краю шапинки
- Контур краю шапинки: лопатевий, хвилястий.
- Профіль краю шапинки
- Профіль краю шапинки: гострий.
- Колір реакції шапинки
- Колір реакції шапинки: чорний.
- Діаметр шапинки
- Діаметр шапинки становить 40–120 mm.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: трубочки.
Трубочки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (трубочки).
- Низхідність гіменофору по ніжці
- у зрілих плодових тіл: Низхідність гіменофору по ніжці: низхідний (трубочки).
- Форма пор
- Форма пор: кутасті.
Форма пор: неправильний. - Колір пор після пошкодження
- Колір пор після пошкодження: синьо-чорна.
- Колір трубочок після пошкодження
- Колір трубочок після пошкодження: синьо-чорна.
- Природний колір пор
- у зрілих плодових тіл: Природний колір пор: жовто-оливковий.
Природний колір пор: жовтий.
Природний колір пор: помаранчевий. - Природний колір трубочок
- Природний колір трубочок: лимонно-жовтий.
у зрілих плодових тіл: Природний колір трубочок: жовто-оливковий.
Ніжка та основа
- Форма ніжки
- Форма ніжки: циліндричний або звужується до основи.
Форма ніжки: веретеноподібний. - Основа ніжки
- Основа ніжки: циліндрична.
Основа ніжки: звужується. - Колір ніжки
- у верхній частині ніжки: Колір ніжки: яскраво-жовтий.
у нижній частині ніжки: Колір ніжки: червоно-коричневий. - Рельєф поверхні ніжки
- у верхній частині ніжки: Рельєф поверхні ніжки: сітчаста.
- Покрив поверхні ніжки
- у нижній частині ніжки: Покрив поверхні ніжки: борошнистий.
- Забарвлення поверхні ніжки після пошкодження
- Забарвлення поверхні ніжки після пошкодження: синьо-чорна (поверхня ніжки).
- Довжина ніжки
- Довжина ніжки: 40–100 mm.
- Діаметр ніжки
- Діаметр ніжки: 5–25 mm.
- Вигин ніжки
- Вигин ніжки: зігнутий.
М'якуш
- Колір м’якуша
- Колір м’якуша: жовтий.
у старих плодових тіл: Колір м’якуша: червоний (м’якуш ніжки).
Колір м’якуша: білувате або жовтуватий. - Щільність м’якуша
- у молодих плодових тіл: Щільність м’якуша: щільний.
- Смак м’якуша
- Смак м’якуша: кислий.
Смак м’якуша: слабкий.
Смак м’якуша: солодкий. - Колір м’якуша після пошкодження
- Колір м’якуша після пошкодження: синьо-чорна (м’якуш шапинки).
Колір м’якуша після пошкодження: синьо-чорна (м’якуш ніжки). - Запах м’якуша
- Запах м’якуша: слабкий.
Де і коли росте
- Оселище
- Оселище: листяний ліс або хвойний ліс.
Оселище: листяний ліс, мішаний ліс, парк або сад.
Оселище: листяний ліс. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці або групами.
- Частота трапляння
- Період плодоношення
- Плодові тіла з’являються з червня до листопада.
- Територія поширення
- Територія поширення: підтверджено.
Їстівність і кулінарія
- Їстівність
- Неїстівний
Право
- Охорона
- У Польщі синьоборовик клиноногий не підлягає правовій охороні видів.
- Торгівля
- Синьоборовик клиноногий не входить до польського переліку грибів, дозволених до обігу та виробництва переробленої продукції.
З чим можна сплутати
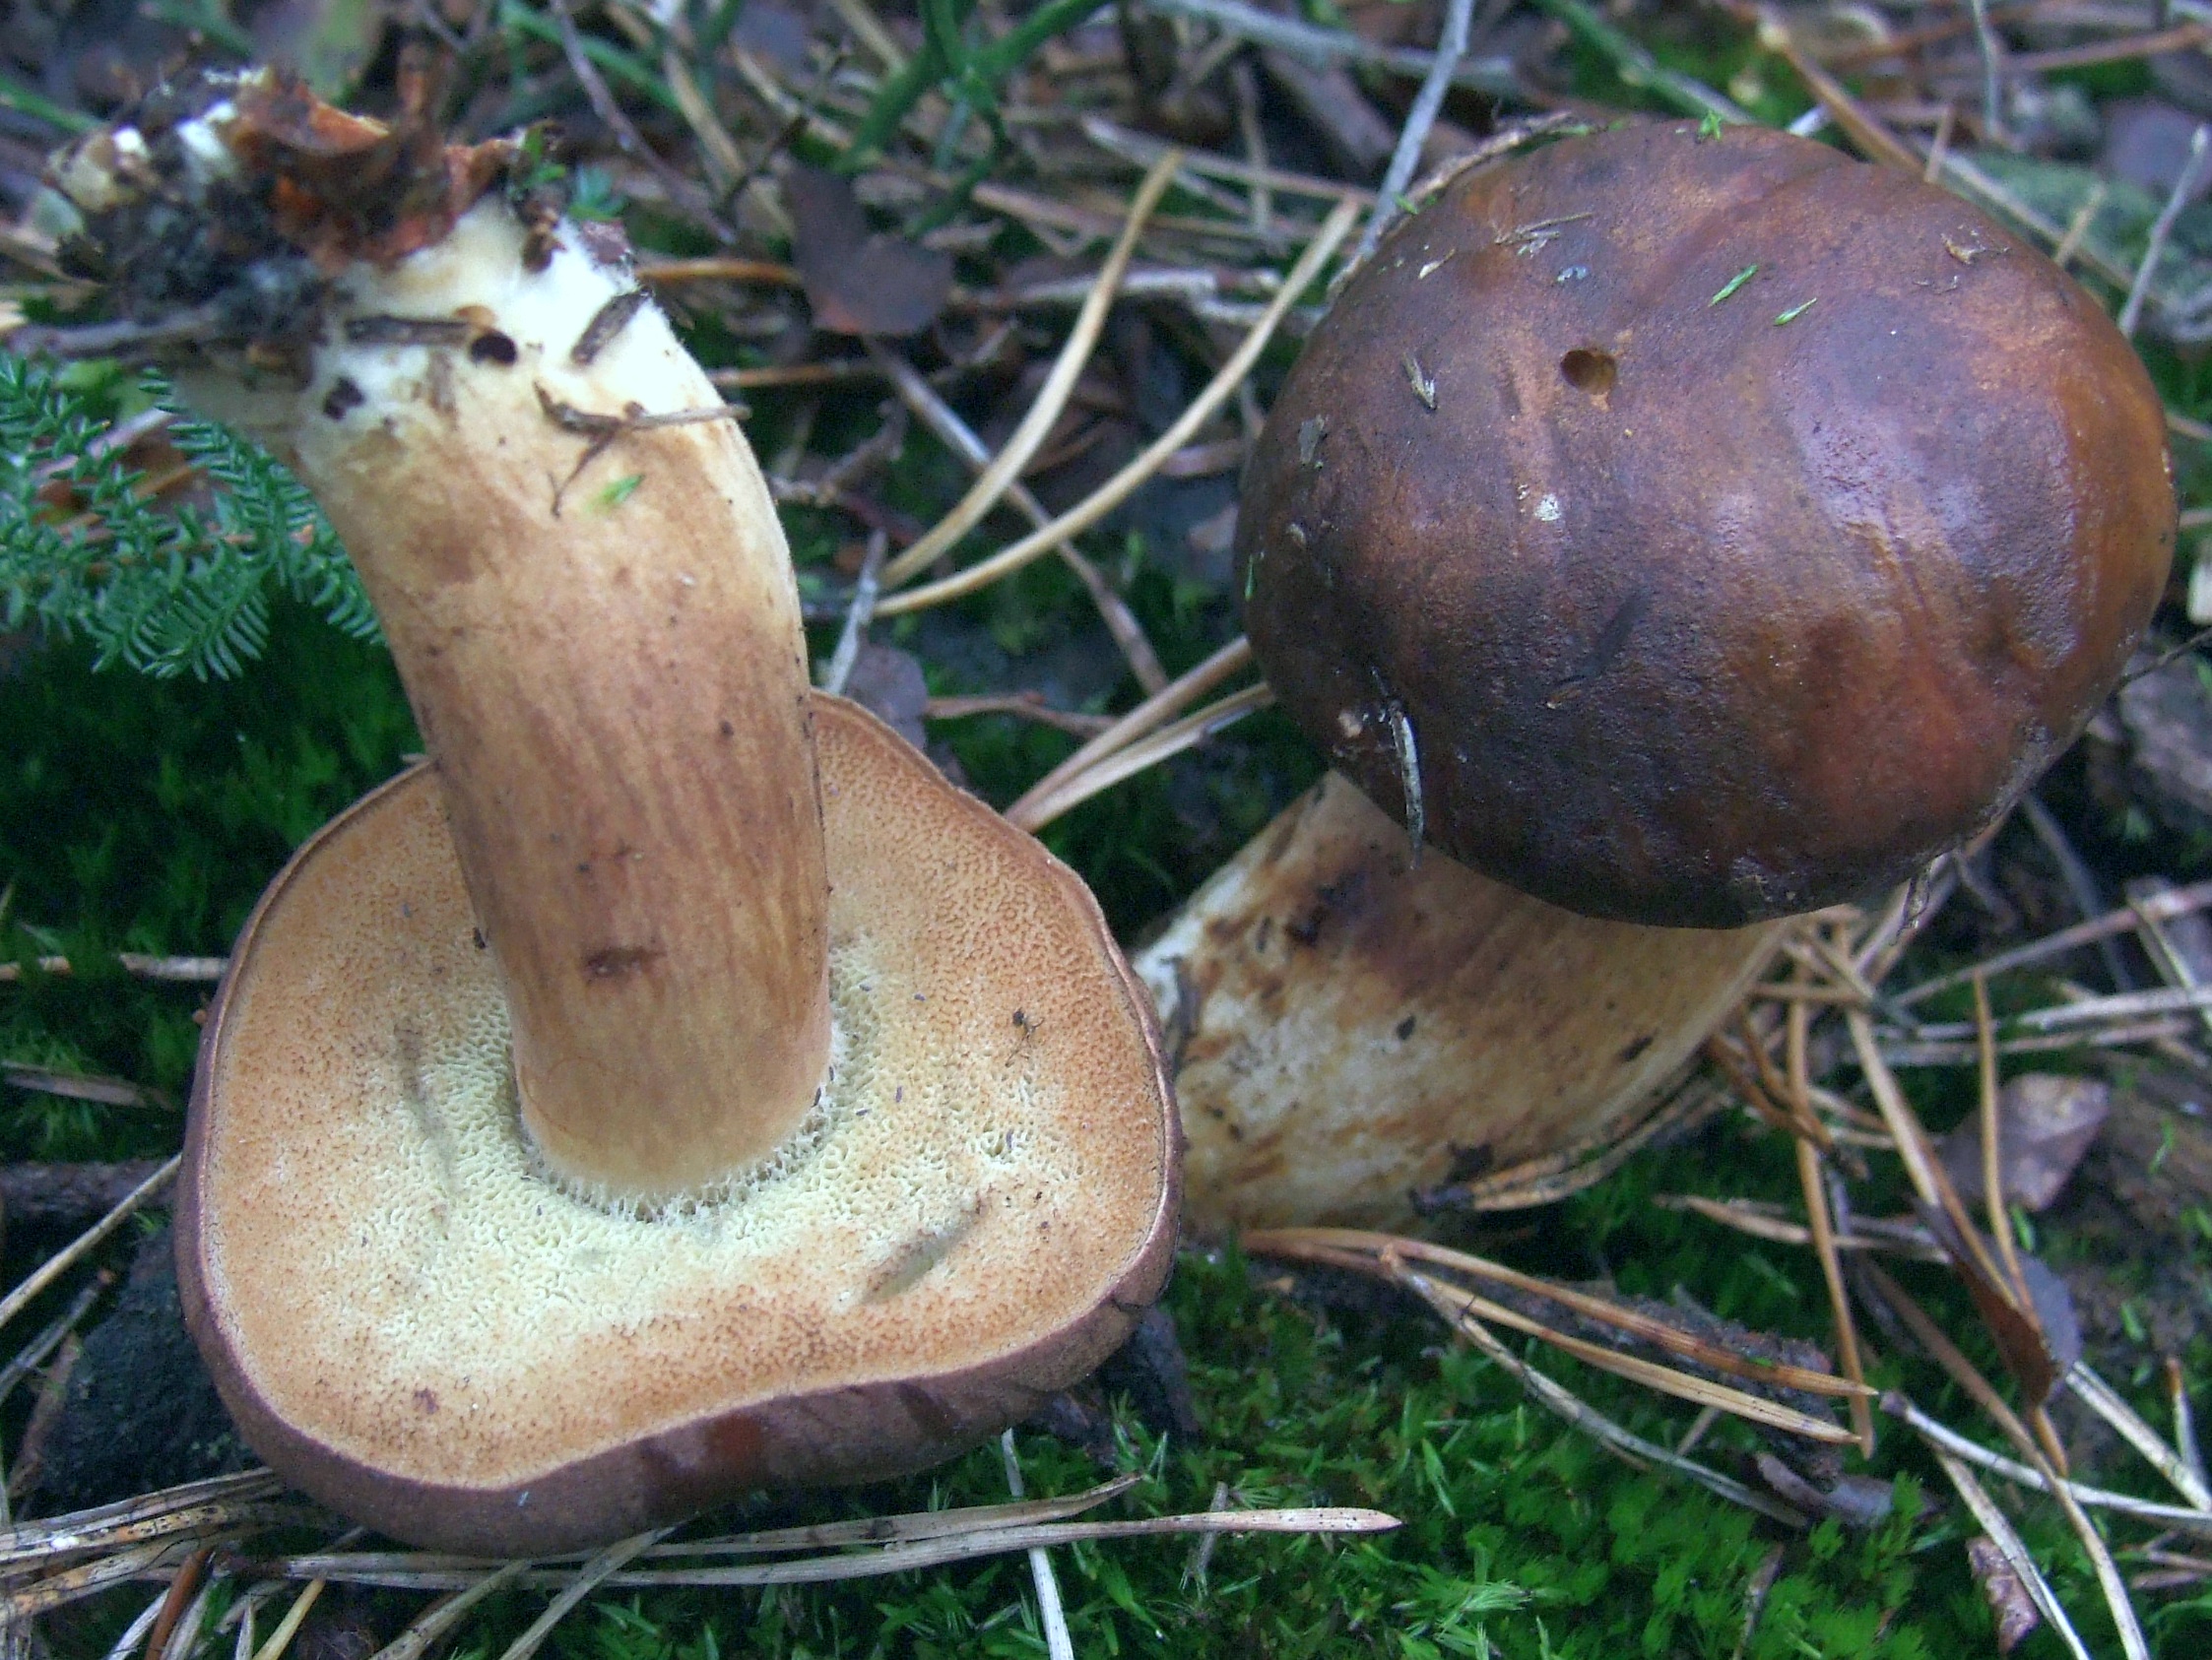
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Джерело фото · CC BY-SA 4.0Imleria badia
Головні відмінності
Синьоборовик клиноногий (Cyanoboletus pulverulentus) реагує на дотик і пошкодження негайним, бурхливим та інтенсивним забарвленням усіх частин плодового тіла в глибокий темно-синьо-чорний колір. У Imleria badia посиніння менш рівномірне і концентрується насамперед над трубочками та у верхній частині ніжки.
FAQ
Чи є синьоборовик клиноногий їстівним грибом?
У давніх атласах його визнавали їстівним, але зараз не рекомендується його споживання. Дослідження показали здатність цього виду до кумуляції миш'яку, тому автори публікацій не радять його споживати.
Чому не рекомендується вживати цей вид?
Причиною є результати досліджень, які свідчать про високе накопичення миш'яку в плодових тілах. Через це мікологи та автори новіших праць рекомендують утриматися від його збирання з кулінарною метою.
Які головні розпізнавальні ознаки цього гриба?
Пори та м'якоть після натискання чи розрізання дуже швидко синіють до темно-синього кольору. Трубочки жовті, а ніжка буває циліндричною або звуженою біля основи, жовтою вгорі та червоно-коричневою внизу.
У яких оселищах зустрічається цей вид?
Росте в листяних, хвойних та мішаних лісах. Його також можна зустріти поза лісом, наприклад у парках і садах.
У яких місяцях його можна зустріти?
У літературі зазначений період появи плодових тіл припадає на проміжок між червнем і листопадом. Різні джерела вказують вужчі діапазони, залежно від місцевих погодних умов.
Чим відрізняється від польського гриба?
Синьоборовик синіє значно швидше й сильніше, набуваючи темного відтінку. Він також має жовті пори та ніжку вгорі жовту, а донизу червоно-коричневу, з можливою делікатною структурою на верхівці.
Як звучить давня польська назва цього виду?
Раніше в польській літературі цей вид функціонував під назвою borowik klinowotrzonowy. Актуальну назву sinoborowik klinowotrzonowy рекомендує Польське мікологічне товариство (PTMyk).
Любитель
Низ шапинки
- Довжина трубочок
- Довжина трубочок: до 15 mm.
Назви та історія
- Чинна національна назва
- sinoborowik klinowotrzonowy
- Чинна таксономічна назва
- Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Колишні національні назви
- borowik klinowotrzonowy, borowik wrażliwy, borowik siniejący, borowik czerniejący, borowik omglony, podgrzybek omglony
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: коричневий.
- Відтінок спорового відбитка
- Відтінок спорового відбитка: оливково-коричневий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: майже веретеноподібний. Форма спори: широкоеліпсоїдний.
- Поверхня спори
- Поверхня спори: гладенький.
- Розміри спори
- Довжина 10–15,5 µm, ширина 4–6 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
Реакція ґрунту: нейтральна. - Листяні дерева в оточенні
- Листяні дерева в оточенні: Castanea sativa, Carpinus betulus, Fagus sylvatica, Quercus cerris, Quercus ilex, Quercus pubescens, Quercus robur або Tilia cordata.
Листяні дерева в оточенні: бук, липа, каштан їстівний або дуб.
Листяні дерева в оточенні: Quercus coccifera, Quercus pyrenaica, Quercus suber, вільха, береза або Ostrya. - Хвойні дерева в оточенні
- Хвойні дерева в оточенні: Pinus nigra, Pinus pinea, Pinus sylvestris, Cedrus libani або тсуга.
Хвойні дерева в оточенні: ялиця або Picea abies. - Кущі в оточенні
- Кущі в оточенні: Corylus avellana.
- Мікоризні партнери
- Загальний зв’язок виду: Мікоризні партнери: Castanea (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Carpinus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Corylus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Fagus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Quercus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Tilia (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Pinus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Cedrus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Tsuga (загальний перелік партнерів). - Тип живлення
- Тип живлення: ектомікоризний.
Історія та культура
Таксономічна історія синьоборовика клиноногого тісно пов'язана з витоками новітньої мікології і має вагомий польський історичний акцент. Цей вид був уперше науково описаний 1836 року під назвою Boletus pulverulentus лікарем і мікологом Вільгельмом Опатовським. Опис з'явився в його визнаній дисертації, присвяченій болетовим грибам (Commentatio historico-naturalis de familia Fungorum Boletoideorum), опублікованій у Берліні. Видовий епітет pulverulentus (лат. припорошений, укритий пилом) стосувався делікатної, ніби припудреної поверхні молодих плодових тіл, що також знайшло відображення в польській загальновживаній назві.
Протягом майже двох століть таксон фігурував у літературі в широкому трактуванні роду Boletus. Перелом у його класифікації настав у 2014 році, коли італійські дослідники Маттео Джеларді, Альфредо Віцціні та Джампаоло Сімоніні провели філогенетичну ревізію болетових і виокремили новий рід Cyanoboletus, до якого перенесли вид Опатовського. Назва нового роду була навіяна вражаючою, темно-синьою колірною реакцією м'якуша, що окислюється. Ці зміни відображають еволюцію систематичних знань у європейській мікологічній літературі.
Їстівність і безпека
Боровик припудрений (Cyanoboletus pulverulentus) — це умовно-їстівний гриб, який вимагає великої обережності від споживача. У сирому вигляді він токсичний і викликає сильне подразнення травного тракту, що проявляється болями в животі, нудотою та блювотою. Специфічною загрозою для здоров'я, пов'язаною з цим видом, є його унікальна здатність до гіперакумуляції арсену з субстрату, зокрема сполук диметиларсинової кислоти.
Обов'язковою умовою для споживання є ґрунтовна термічна обробка — відварювання протягом щонайменше 15–20 хвилин зі зливанням відвару або ретельне смаження. Попри приготування, не рекомендується вживати його великими порціями або регулярно; його слід розглядати виключно як гриб для періодичного споживання.
М'якуш сирого гриба має приємний, м'який, злегка горіховий смак і ніжний аромат. Під дією натискання та розрізання відразу інтенсивно синіє, а потім темніє, що після відварювання надає страві майже чорного забарвлення.
Підхід до споживання різниться за регіонами. У Польщі, Чехії та Словаччині його охоче збирають досвідчені грибники як смачний домашній гриб, тоді як у Західній Європі (зокрема в Німеччині) через занепокоєння щодо вмісту арсену санітарні установи рекомендують стриманість і не радять його збирати.
Оселище та зростання
Синьоборовик клиноногий (Cyanoboletus pulverulentus) поширений у Європі, де заселяє різноманітні листяні та мішані ліси. У польській мікобіоті вважається рідкісним таксоном і внесений до національного червоного списку 2006 року зі статусом R (рідкісний — потенційно під загрозою зникнення). Сучасні систематичні та філогенетичні дослідження чітко розмежовують північноамериканські знахідки від європейського виду, підтверджений ареал якого охоплює європейські країни.
Цей вид утворює ектомікоризу передусім із листяними деревами. Найчастіше супроводжує дуби (Quercus), буки (Fagus sylvatica), граби (Carpinus betulus) та липи (Tilia). Спорадично відзначається під хвойними деревами, такими як ялини чи сосни. За межами лісів трапляється в міських парках, садах та придорожніх алеях, а на півдні Європи зустрічається, зокрема, у термофільних дібровах та насадженнях із каштаном їстівним (Castanea sativa).
Віддає перевагу родючим, глинистим або піщано-глинистим ґрунтам. Плодові тіла найохочіше виростають на відкритій, вологій землі — у придорожніх канавах, на укосах лісових стежок та в місцях із тонким шаром підстилки. У Польщі задокументований у зведеннях діапазон появи плодових тіл охоплює місяці з червня по листопад (VI–XI), що окреслює часові межі зафіксованих спостережень, а не емпіричний розподіл чисельності.
Дослідник
Їстівність і кулінарія
Дані джерел: їстівність, споживання та використання
- Їстівність
- Неїстівний — джерело визначення
Źródło bez opisu bibliograficznego · img.icon[src="/mykoatlas/noedible.png"]@title: Nejedlá houba
Наукові назви та таксономія
- Чинна наукова назва
Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Колишні наукові назви
- Boletus pulverulentus Opat.[31]
Gatunek został po raz pierwszy opisany naukowo w 1836 roku przez polskiego lekarza i mykologa Wilhelma Bogusława Opatowskiego pod nazwą Boletus pulverulentus. Przez dziesięciolecia klasyfikowano go w rodzaju Boletus lub zaliczano do podrodzaju Xerocomus. W 2014 roku włoscy mykolodzy Matteo Gelardi, Alfredo Vizzini i Giampaolo Simonini, w oparciu o analizy filogenetyczne sekwencji DNA, wykazali jego ewolucyjną odrębność i utworzyli nowy rodzaj Cyanoboletus (z greckiego kyanos – ciemnoniebieski, modry), wyznaczając sinoborowika klinowotrzonowego jako gatunek typowy. Łaciński epitet pulverulentus pochodzi od słowa pulvis (pył, proch) i oznacza „oprószony” lub „omglony”, co odnosi się do matowej, delikatnie aksamitnej powłoki młodych kapeluszy.
- Zakres ujęcia taksonomicznego
Cyanoboletus pulverulentus wskazany jako aktualna nazwa na stronie PTMyk; źródłowe przypisanie nazw do rekordu, bez rozstrzygnięcia zgodności zakresów dawnych nazw.
[31]
Екологія та поширення
- Частота трапляння
- Нідерланди: Частота трапляння: нечастий. [1]
Лабораторна діагностика
Структуровані дані
Базидії
- Кількість спор на базидії
- Кількість спор на базидії становить 4. [27]
- Пряжки
- Пряжки: відсутній. [29]
Гіменіальні цистиди
- Форма гіменіальної цистиди
- Форма гіменіальної цистиди: веретеноподібна до пляшкоподібної. [23]
- Наявність гіменіальних глеоцистид
- Наявність гіменіальних глеоцистид: наявний. [23]
Наявність гіменіальних глеоцистид: наявний. [23] - Кількість гіменіальних глеоцистид
- Кількість гіменіальних глеоцистид: нечисленні. [23]
Шкірка шапинки
- Інкрустація гіф шкірки
- Інкрустація гіф шкірки: наявний. [29]
- Колір пігменту шкірки
- Колір пігменту шкірки: коричневий. [29]
- Будова шкірки шапинки
- Будова шкірки шапинки: триходерм. [29]
Будова шкірки шапинки: палісадодерма. [22] - Форма верхівки кінцевої клітини шкірки шапинки
- Форма верхівки кінцевої клітини шкірки шапинки: заокруглений. [29]
- Довжина кінцевої клітини шкірки шапинки
- Довжина кінцевої клітини шкірки шапинки: 45–80 µm. [29]
- Форма кінцевої клітини шкірки шапинки
- Форма кінцевої клітини шкірки шапинки: циліндричний. [29]
- Ширина кінцевої клітини шкірки шапинки
- Ширина кінцевої клітини шкірки шапинки: 3–6,5 µm. [29]
Реакції з реактивами
- Амілоїдна реакція
- Амілоїдна реакція: негативний. [23]
Послідовності ДНК
- Послідовність
Cyanoboletus pulverulentus; ITS; LT714707; PRM 944013
Спори
- Положення виростка рубчика базидіоспори
- Положення виростка рубчика базидіоспори: бічний (сильно). [23]
- Форма верхівки спори
- Форма верхівки спори: гострий. [23]
- Колір спор під мікроскопом
- Колір спор під мікроскопом: блідо-жовтий. [29]
- Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 2,6–3. [29]
- Форма спори
- Форма спори: вузькомигдалеподібний. [23]
Форма спори: майже веретеноподібний. [17]
Форма спори: широкоеліпсоїдний. [17] - Заглиблення над рубчиком базидіоспори
- Заглиблення над рубчиком базидіоспори: виразне. [23]
- Поверхня спори
- Поверхня спори: гладенький. [17]
- Товщина стінки спори
- Товщина стінки спори: товстостінний. [29]
Трама гіменофора
- Тип трами гіменофора
- Тип трами гіменофора: білатеральна (підтип Boletus). [32]
Матеріал і методи досліджень
- Результати, наведені в джерелах — Довжина спори
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 12,5–14,5 µm (skrajnie do 15,5 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 10–14 µm [30] - Результати, наведені в джерелах — Ширина спори
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 4,2–5,2 µm (skrajnie do 5,4 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 4–6 µm [30]
Metody i zapisy źródłowe — European B. pulverulentus in a comparative paragraph; published European literature and author observations, without a named result-bearing voucher.
Liczba zarodników na jednej podstawce — zapis źródłowy: „European B. pulverulentus: the shorter and wider 4-spored basidia” [27]
Metody i zapisy źródłowe — C. pulverulentus PO-F2601, author-labelled SEM panels 4c–f.; C. pulverulentus PO-F2601, author-labelled KOH panel 4h.; Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.; Conditional author identification-key branch 3 for C. pulverulentus.
Numer okazu: PO-F2601.
Materiał źródłowy: C. pulverulentus PO-F2601, author-labelled KOH panel 4h.
Numer okazu: PO-F2601.
Materiał źródłowy: Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.
Materiał źródłowy: Conditional author identification-key branch 3 for C. pulverulentus.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Author-labelled SEM panels; section 2.2 lists instruments collectively, without assigning one to each panel.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Opis metody w źródle: Figure 4h; concentration/objective for this panel unreported.
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Cyanoboletus pulverulentus is macroscopically characterised by small to medium-sized basidiomes, growing solitary or in groups. The pileus is rather variable in colouration: yellow, buff brown, olivaceus brown to raspberry red, with a silky to slightly viscous surface and an acute pileus margin; the stipe is yellow, sometimes with brown or reddish colours in the lower part, rarely with a reticulum in the upper part [2]; tubes are lemon yellow; the context is yellow, sometimes reddish in the stipe of aged basidiomes, which turns intense blue with a turquoise tint (Figure 3). Microscopically, this species is characterised by narrow-amygdaliform, subfusiform-subamygdaliform, or amygdaliform basidiospores, often with a strongly lateralised apiculus (hilar appendix) and pronounced suprahilar depression, (10.91) 12.29 ± 0.9 (13.46) × (4.53) 4.87 ± 0.32 (5.39) µm, with the largest Q value of the European species of Cyanoboletus—(2.41) 2.53 ± 0.18 (2.73) (Figure 4c,d, Figure 5 and Figure 6). Thriving in acidic to neutral soils across temperate European and Macaronesian forests, mycorrhizal with broadleaves and conifers. It also differs from other European Cyanoboletus species and C. cyaneitinctus by arsenic hyperaccumulation ([40] and this study).” [23]
Kształt cystydy hymenialnej; Kształt szczytu zarodnika; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Obfitość gleocystyd hymenialnych; Obecność gleocystyd hymenialnych — zapis źródłowy: „3. Basidiospores often narrowly amygdaliform, with pronounced lateralised apiculus, pronounced suprahilar depression, and with relatively acute apex; gloeocystidia sparse………………………………………………………………………………………………………………………………………………………………………………………………………..C. pulverulentus” [23]
Obecność gleocystyd hymenialnych — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Metody i zapisy źródłowe — Explicit species-level anatomical attribution, not a result assigned to one voucher.
Typ tramy hymenoforu — zapis źródłowy: „The true boletoid trama … Boletus pulverulentus” [32]
Metody i zapisy źródłowe — Author species account and illustrated BAR2000072503; two listed collections are retained separately.
Pochodzenie materiału: Northern Spain: Cantabria and Navarra; exact two collection records retained separately..
Inkrustacja strzępek skórki — zapis źródłowy: „finamente incrustadas” [29]
Barwa pigmentu skórki — zapis źródłowy: „pigmento intracelular marrón” [29]
Organizacja skórki kapelusza — zapis źródłowy: „tricoderma” [29]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „elementos terminales … cilindráceos, con al ápice redondeado, de calibre 45–80 × 3–5.5 (6.5) µm” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „amarillo pálidas” [29]
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „12.5–14.5(15.5) × 4.2–5.2(5.4) µm; Q=2.6–2.9(3)” [29]
Grubość ściany zarodnika — zapis źródłowy: „paredes espesas” [29]
Metody i zapisy źródłowe — Boris Assyov authorial species account; no voucher-specific microscopic result supplied.
Organizacja skórki kapelusza — zapis źródłowy: „Pileipellis a palisadoderm of cylindrical, finely incrusted cells.” [22]
Metody i zapisy źródłowe — Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection.
Pochodzenie materiału: Netherlands, Valburg/Oosterhout and Bunde/Bunderbos..
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Spores (n=20) 10.0–14.0 × 4.0–6.0 µm” [30]
Metody i zapisy źródłowe — First Nature focal species spore description.
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Spores: Subfusiform to broadly ellipsoidal, smooth.” [17]
Верифікація трапляння — межі та обмеження
Materiał: Polska kolekcja autora pod źródłową nazwą Boletus pulverulentus; nie przeniesiono danych azjatyckich segregatów.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[19]Спільні обмеження зчитування джерела
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Охоплення опрацювання
Перед завершенням запис потребує доповнення або перевірки.
- Пошук регіонів поширення потребує розрахунку.
- Зв'язки попередніх висновків потребують повторної перевірки.
- Нові джерела вимагають обліку інформації, виявленої під час огляду.
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Найважливіші речовини та їхня дія
Cyanoboletus pulverulentus wyróżnia się wśród wszystkich europejskich grzybów rurkowych wyjątkową zdolnością gromadzenia arsenu w owocnikach, co stało się przedmiotem szczegółowych badań chemicznych i toksykologicznych:
Hiperakumulacja arsenu i formy chemiczne (spesjacja): W badaniu analitycznym z 2018 roku (Bräuer i in., opublikowanym w czasopiśmie Food Chemistry) oznaczono całkowitą zawartość arsenu w 39 kolekcjach początkowo rozpoznanych jako C. pulverulentus (36 kolekcji z Czech oraz po jednej z Francji, Portugalii i USA). Całkowite stężenie arsenu wynosiło średnio 250 mg/kg suchej masy (odchylenie standardowe SD = 260 mg/kg), z medianą 160 mg/kg i zakresem od 2,4 do 1300 mg/kg suchej masy. Jedną kolekcję z USA autorzy zaliczyli później do innego, prawdopodobnie jeszcze nieopisanego gatunku z rodzaju Cyanoboletus; podane statystyki dotyczą pierwotnej grupy 39 kolekcji i nie były przeliczane osobno dla pozostałych 38.
Skład chemiczny związków arsenu i rozkład w owocniku: W wyciągach wodnych z badanych owocników kwas dimetyloarsenowy (DMA – dimethylarsinic acid) wykryto we wszystkich 39 kolekcjach (100%), gdzie stanowił on od 79% do 110% (i ponad 99% wykrytych frakcji rozpuszczalnych) wyekstrahowanego arsenu. Zastosowana analiza spesjacyjna poszczególnych form chemicznych dała sumaryczny wynik odpowiadający 43–110% oznaczenia arsenu całkowitego (średnio 71 ± 9%). Odsetek ten stanowi analityczne porównanie dwóch niezależnych procedur pomiarowych, a nie bezpośredni udział DMA w całym arsenie czy wyznaczoną dawkę dla konsumenta. W 8 z 39 przebadanych kolekcji stwierdzono ponadto śladowe ilości kwasu monometylarsenowego (MA, 0,04–0,19% wyekstrahowanego As). Zastosowana metoda analityczna nie wykryła obecności nieorganicznego arsenu (arsenianów ani arseninów), co oznacza poziom poniżej granicy wykrywalności aparatury, lecz nie dowodzi jego absolutnego braku. Skuteczność ekstrakcji laboratoryjnej była niepełna. W tym samym badaniu (Bräuer i in. 2018) analizowano również szczegółowy rozkład arsenu w poszczególnych częściach owocnika na przykładzie dwóch okazów (Fig. 3); wykazano, że większość zakumulowanego arsenu koncentrowała się w hymenium (warstwie rurek z zarodnikami). Wynik ten oparto na pomiarze dwóch owocników i nie stanowi on podstawy do wyznaczania procedur obróbki kulinarnej.
Wyniki badań toksykologicznych DMA i ocena ryzyka: Kwas dimetyloarsenowy jest organicznym związkiem arsenu, sklasyfikowanym przez Międzynarodową Agencję Badań nad Rakiem (IARC) w Grupie 2B jako substancja przypuszczalnie rakotwórcza dla ludzi. Klasyfikacja ta dotyczy czystego związku chemicznego, a nie całego grzyba czy pojedynczego posiłku. W osobnym badaniu laboratoryjnym (Yamanaka i in. 2001) podawanie samego związku DMA myszom drogą pokarmową doprowadziło do podwyższenia poziomu 8-oxo-dG (8-okso-2'-deoksyguanozyny – uznanego biomarkera oksydacyjnych uszkodzeń materiału genetycznego DNA) w skórze, płucach, wątrobie, pęcherzu moczowym oraz w moczu zwierząt. Jako potencjalny mechanizm uszkodzeń autorzy rozważali powstawanie wolnego rodnika dimetyloarsenowego. Badanie to dotyczyło podawania czystego związku modelowym gryzoniom, w związku z czym wynik ten nie stanowi bezpośredniego dowodu wystąpienia takich samych skutków po zjedzeniu owocnika grzyba przez człowieka.
W oparciu o Margines Ekspozycji (MoE) badacze (Bräuer i in. 2018) przeanalizowali scenariusze modelowe dla osoby o masie około 70 kg, szacując orientacyjne roczne spożycie świeżych owocników na poziomie około 90 g/rok przy medianie stężenia DMA (odpowiadającej ok. 12 mg As/kg świeżej masy), 12 g/rok przy stężeniu maksymalnym oraz 10 kg/rok przy stężeniu minimalnym. Są to czysto teoretyczne kalkulacje modelowe ryzyka, a nie normy dietetyczne czy progi bezpieczeństwa. W konkluzji zespół Simone Bräuer zalecił, aby gatunek ten nie był już rekomendowany jako jadalny, odradzając regularne spożywanie w ilości przekraczającej 90 g świeżej masy rocznie ze względu na potencjał rakotwórczy DMA. Z kolei autorzy śródziemnomorskiej rewizji taksonomicznej z 2026 r. (Biketova i in.) sformułowali bardziej kategoryczne stanowisko, zalecając całkowite powstrzymanie się od konsumpcji grzybów z rodzaju Cyanoboletus.
Оселище та зростання
Оселище, ареал і пора року
Sinoborowik klinowotrzonowy występuje w Europie i Makaronezji w strefie lasów umiarkowanych, tworząc mikoryzę z drzewami liściastymi (głównie dębami i bukami), a także sporadycznie z drzewami iglastymi (świerk). Spotykany jest w lasach liściastych, mieszanych, a także na obrzeżach dróg leśnych i w starych parkach. Preferuje gleby wilgotne, gliniaste, ilaste lub piaszczysto-gliniaste, o odczynie od słabo kwaśnego do obojętnego lub zasadowego. W opisach z Holandii wskazuje się na gleby wilgotne i umiarkowanie bogate w składniki odżywcze. W Polsce należy do grzybów rzadkich i rozproszonych; współczesne inwentaryzacje mikologiczne odnotowały jego występowanie m.in. w 2020 roku w rezerwacie przyrody „Paraszyńskie Wąwozy” na Pomorzu (w kwaśnej buczynie niżowej). Owocniki wyrastają od lata do jesieni (od maja/czerwca do listopada).
Підтверджений ареал поширення
Усі території підтверджені в збережених даних джерел.
| Країна | Регіони та місцезнаходження | Плодоношення | Джерела |
|---|---|---|---|
| Андорра | У збережених даних не визначено регіонів | Не визначено |
|
| Австрія | У збережених даних не визначено регіонів | Не визначено |
|
| Бельгія | У збережених даних не визначено регіонів | Не визначено |
|
| Болгарія | У збережених даних не визначено регіонів | Не визначено |
|
| Швейцарія | У збережених даних не визначено регіонів | Не визначено |
|
| Чехія | У збережених даних не визначено регіонів | Не визначено |
|
| Німеччина | У збережених даних не визначено регіонів | Не визначено |
|
| Данія | У збережених даних не визначено регіонів | Не визначено |
|
| Іспанія | У збережених даних не визначено регіонів | Не визначено |
|
| Франція | У збережених даних не визначено регіонів | Не визначено |
|
| Велика Британія | У збережених даних не визначено регіонів | VII–X |
|
| Греція | У збережених даних не визначено регіонів | Не визначено |
|
| Хорватія | У збережених даних не визначено регіонів | Не визначено |
|
| Угорщина | У збережених даних не визначено регіонів | Не визначено |
|
| Ірландія | У збережених даних не визначено регіонів | VII–X |
|
| Іран | У збережених даних не визначено регіонів | Не визначено |
|
| Італія | У збережених даних не визначено регіонів | Не визначено |
|
| Литва | У збережених даних не визначено регіонів | Не визначено |
|
| Люксембург | У збережених даних не визначено регіонів | Не визначено |
|
| Молдова | У збережених даних не визначено регіонів | Не визначено |
|
| Північна Македонія | У збережених даних не визначено регіонів | Не визначено |
|
| Мальта | У збережених даних не визначено регіонів | Не визначено |
|
| Нідерланди | У збережених даних не визначено регіонів | Не визначено |
|
| Норвегія | У збережених даних не визначено регіонів | Не визначено |
|
| Польща | Біловезька пуща | VI–XI |
|
| Португалія | У збережених даних не визначено регіонів | Не визначено |
|
| Румунія | У збережених даних не визначено регіонів | Не визначено |
|
| Сербія | У збережених даних не визначено регіонів | Не визначено |
|
| Росія | У збережених даних не визначено регіонів | Не визначено |
|
| Швеція | У збережених даних не визначено регіонів | Не визначено |
|
| Словенія | У збережених даних не визначено регіонів | Не визначено |
|
| Словаччина | У збережених даних не визначено регіонів | Не визначено |
|
| Туреччина | У збережених даних не визначено регіонів | Не визначено |
|
| Україна | У збережених даних не визначено регіонів | Не визначено |
|
Джерела
- NDFF Verspreidingsatlas: Cyanoboletus pulverulentus
- cyanoboletus_pulverulentus.deep20261014.collection-documentation
- Weryfikacja polskiego statusu prawnego sinoborowika, 15.10.2026
- Pat O’Reilly, Cyanoboletus pulverulentus — opis terenowy
- Pierwotny zapis źródłowy — P0: cyanoboletus_pulverulentus
- src-assyov-boletales-cyano
- src-biketova-2026
- Rozporządzenie Ministra Środowiska z 9 października 2014 r., Dz.U. 2014 poz. 1408.
- Obwieszczenie Ministra Zdrowia z 13 lutego 2026 r., Dz.U. 2026 poz. 258; jednolity tekst rozporządzenia w sprawie grzybów dopuszczonych do obrotu.
- src-gelardi-2013
- src-munoz-2022-cyano
- src-oolbekkink-1991
- PTMyk — sinoborowik klinowotrzonowy, nazwa aktualna i historyczne
- src-sutara-2005