
Nejedlý
Nastavte polohu, aby sa zobrazili údaje pre váš región.


Hríb modrajúci je huba z čeľade hríbovitých, vyskytujúca sa v listnatých, ihličnatých a zmiešaných lesoch, ako aj v parkoch. Vytvára klobúk hnedej až olivovohnedej farby a žlté póry. Hlúbik býva valcovitý alebo zužujúci sa k báze, hore žltý a v dolnej časti červenohnedý. Charakteristickým znakom je neobyčajne rýchle a silné modranie pórov a dužiny po stlačení. V minulosti bol považovaný za jedlú hubu, v súčasnosti sa neodporúča, keďže výskumy preukázali akumuláciu arzénu.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
- Konzistencia celej plodnice
- Konzistencia celej plodnice: mäsitý.
Klobúk
- Tvar klobúka
- pri mladých plodniciach: Tvar klobúka: polguľovitý.
pri zrelých plodniciach: Tvar klobúka: vypuklý.
pri starých plodniciach: Tvar klobúka: plochý.
pri zrelých plodniciach: Tvar klobúka: plochý. - Reliéf povrchu klobúka
- pri zrelých plodniciach: Reliéf povrchu klobúka: hladký.
- Pokryv klobúka
- pri mladých plodniciach: Pokryv klobúka: zamatový.
Pokryv klobúka: hodvábna.
pri mladých plodniciach: Pokryv klobúka: osinovatený.
pri mladých plodniciach: Pokryv klobúka: plstnatý.
pri zrelých plodniciach: Pokryv klobúka: holá. - Lesk povrchu klobúka
- pri mladých plodniciach: Lesk povrchu klobúka: matný.
- Lepkavosť a slizkosť klobúka
- za mokra: Lepkavosť a slizkosť klobúka: lepkavý.
Lepkavosť a slizkosť klobúka: lepkavý. - Usporiadanie prasklín povrchu
- Usporiadanie prasklín povrchu: popraskaná, vzor neuvedený.
- Farba klobúka
- Farba klobúka: hnedý.
Farba klobúka: Karmínová.
Farba klobúka: Tmavohnedá.
Farba klobúka: Sivozelená.
Farba klobúka: olivový.
Farba klobúka: Olivovohnedá.
Farba klobúka: Ružová.
Farba klobúka: červenohnedý.
Farba klobúka: Žltá.
Farba klobúka: žltohnedý.
Farba klobúka: Žltkastá.
Farba klobúka: Špinavo tmavohnedá. - Usporiadanie okraja
- Usporiadanie okraja: rovný.
pri starých plodniciach: Usporiadanie okraja: ohnutý nahor.
pri mladých plodniciach: Usporiadanie okraja: zahnutý dovnútra. - Obrys okraja klobúka
- Obrys okraja klobúka: laločnatý, zvlnený.
- Profil okraja klobúka
- Profil okraja klobúka: ostrý.
- Farebná reakcia klobúka
- Farebná reakcia klobúka: čierny.
- Priemer klobúka
- Priemer klobúka je 40–120 mm.
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: rúrky.
Rúrky pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: prirastený k hlúbiku (rúrky).
- Zbiehavosť hymenoforu na hlúbik
- pri zrelých plodniciach: Zbiehavosť hymenoforu na hlúbik: zbiehavý (rúrky).
- Tvar pórov
- Tvar pórov: hranaté.
Tvar pórov: nepravidelný. - Farba pórov po poranení
- Farba pórov po poranení: modročierna.
- Farba rúrok po poranení
- Farba rúrok po poranení: modročierna.
- Prirodzená farba pórov
- pri zrelých plodniciach: Prirodzená farba pórov: žltoolivový.
Prirodzená farba pórov: žltý.
Prirodzená farba pórov: oranžový. - Prirodzená farba rúrok
- Prirodzená farba rúrok: citrónovožltý.
pri zrelých plodniciach: Prirodzená farba rúrok: žltoolivový.
Hlúbik a báza
- Tvar hlúbika
- Tvar hlúbika: valcovitý alebo zužujúci sa k báze.
Tvar hlúbika: vretenovitý. - Báza hlúbika
- Báza hlúbika: valcovitá.
Báza hlúbika: zužujúci sa. - Farba hlúbika
- v hornej časti hlúbika: Farba hlúbika: sýto žltý.
v dolnej časti hlúbika: Farba hlúbika: červenohnedý. - Reliéf povrchu hlúbika
- v hornej časti hlúbika: Reliéf povrchu hlúbika: sieťovitá.
- Pokryv povrchu hlúbika
- v dolnej časti hlúbika: Pokryv povrchu hlúbika: osinovatený.
- Farba povrchu hlúbika po poškodení
- Farba povrchu hlúbika po poškodení: modročierna (povrch hlúbika).
- Dĺžka hlúbika
- Dĺžka hlúbika: 40–100 mm.
- Priemer hlúbika
- Priemer hlúbika: 5–25 mm.
- Zakrivenie hlúbika
- Zakrivenie hlúbika: ohnutý.
Dužina
- Farba dužiny
- Farba dužiny: žltý.
pri starých plodniciach: Farba dužiny: červený (dužina hlúbika).
Farba dužiny: belavá alebo Žltkastá. - Pevnosť dužiny
- pri mladých plodniciach: Pevnosť dužiny: pevný.
- Chuť dužiny
- Chuť dužiny: kyslý.
Chuť dužiny: slabý.
Chuť dužiny: sladký. - Farba dužiny po poranení
- Farba dužiny po poranení: modročierna (dužina klobúka).
Farba dužiny po poranení: modročierna (dužina hlúbika). - Vôňa dužiny
- Vôňa dužiny: slabý.
Kde a kedy rastie
- Stanovište
- Stanovište: listnatý les alebo ihličnatý les.
Stanovište: listnatý les, zmiešaný les, park alebo záhrada.
Stanovište: listnatý les. - Substrát
- Substrát: pôda.
- Spôsob rastu plodníc
- Spôsob rastu plodníc: jednotlivo alebo v skupinách.
- Frekvencia výskytu
- Obdobie rastu
- Plodnice sa objavujú od júna do novembra.
- Oblasť výskytu
- Oblasť výskytu: potvrdený.
Jedlosť a kuchyňa
- Jedlosť
- Nejedlý
Právo
- Ochrana
- V Poľsku hríb sinavý nepodlieha zákonnej druhovej ochrane.
- Obchod
- Hríb sinavý nefiguruje v poľskom zozname húb povolených na uvádzanie na trh a výrobu spracovaných produktov.
Možnosť zámeny
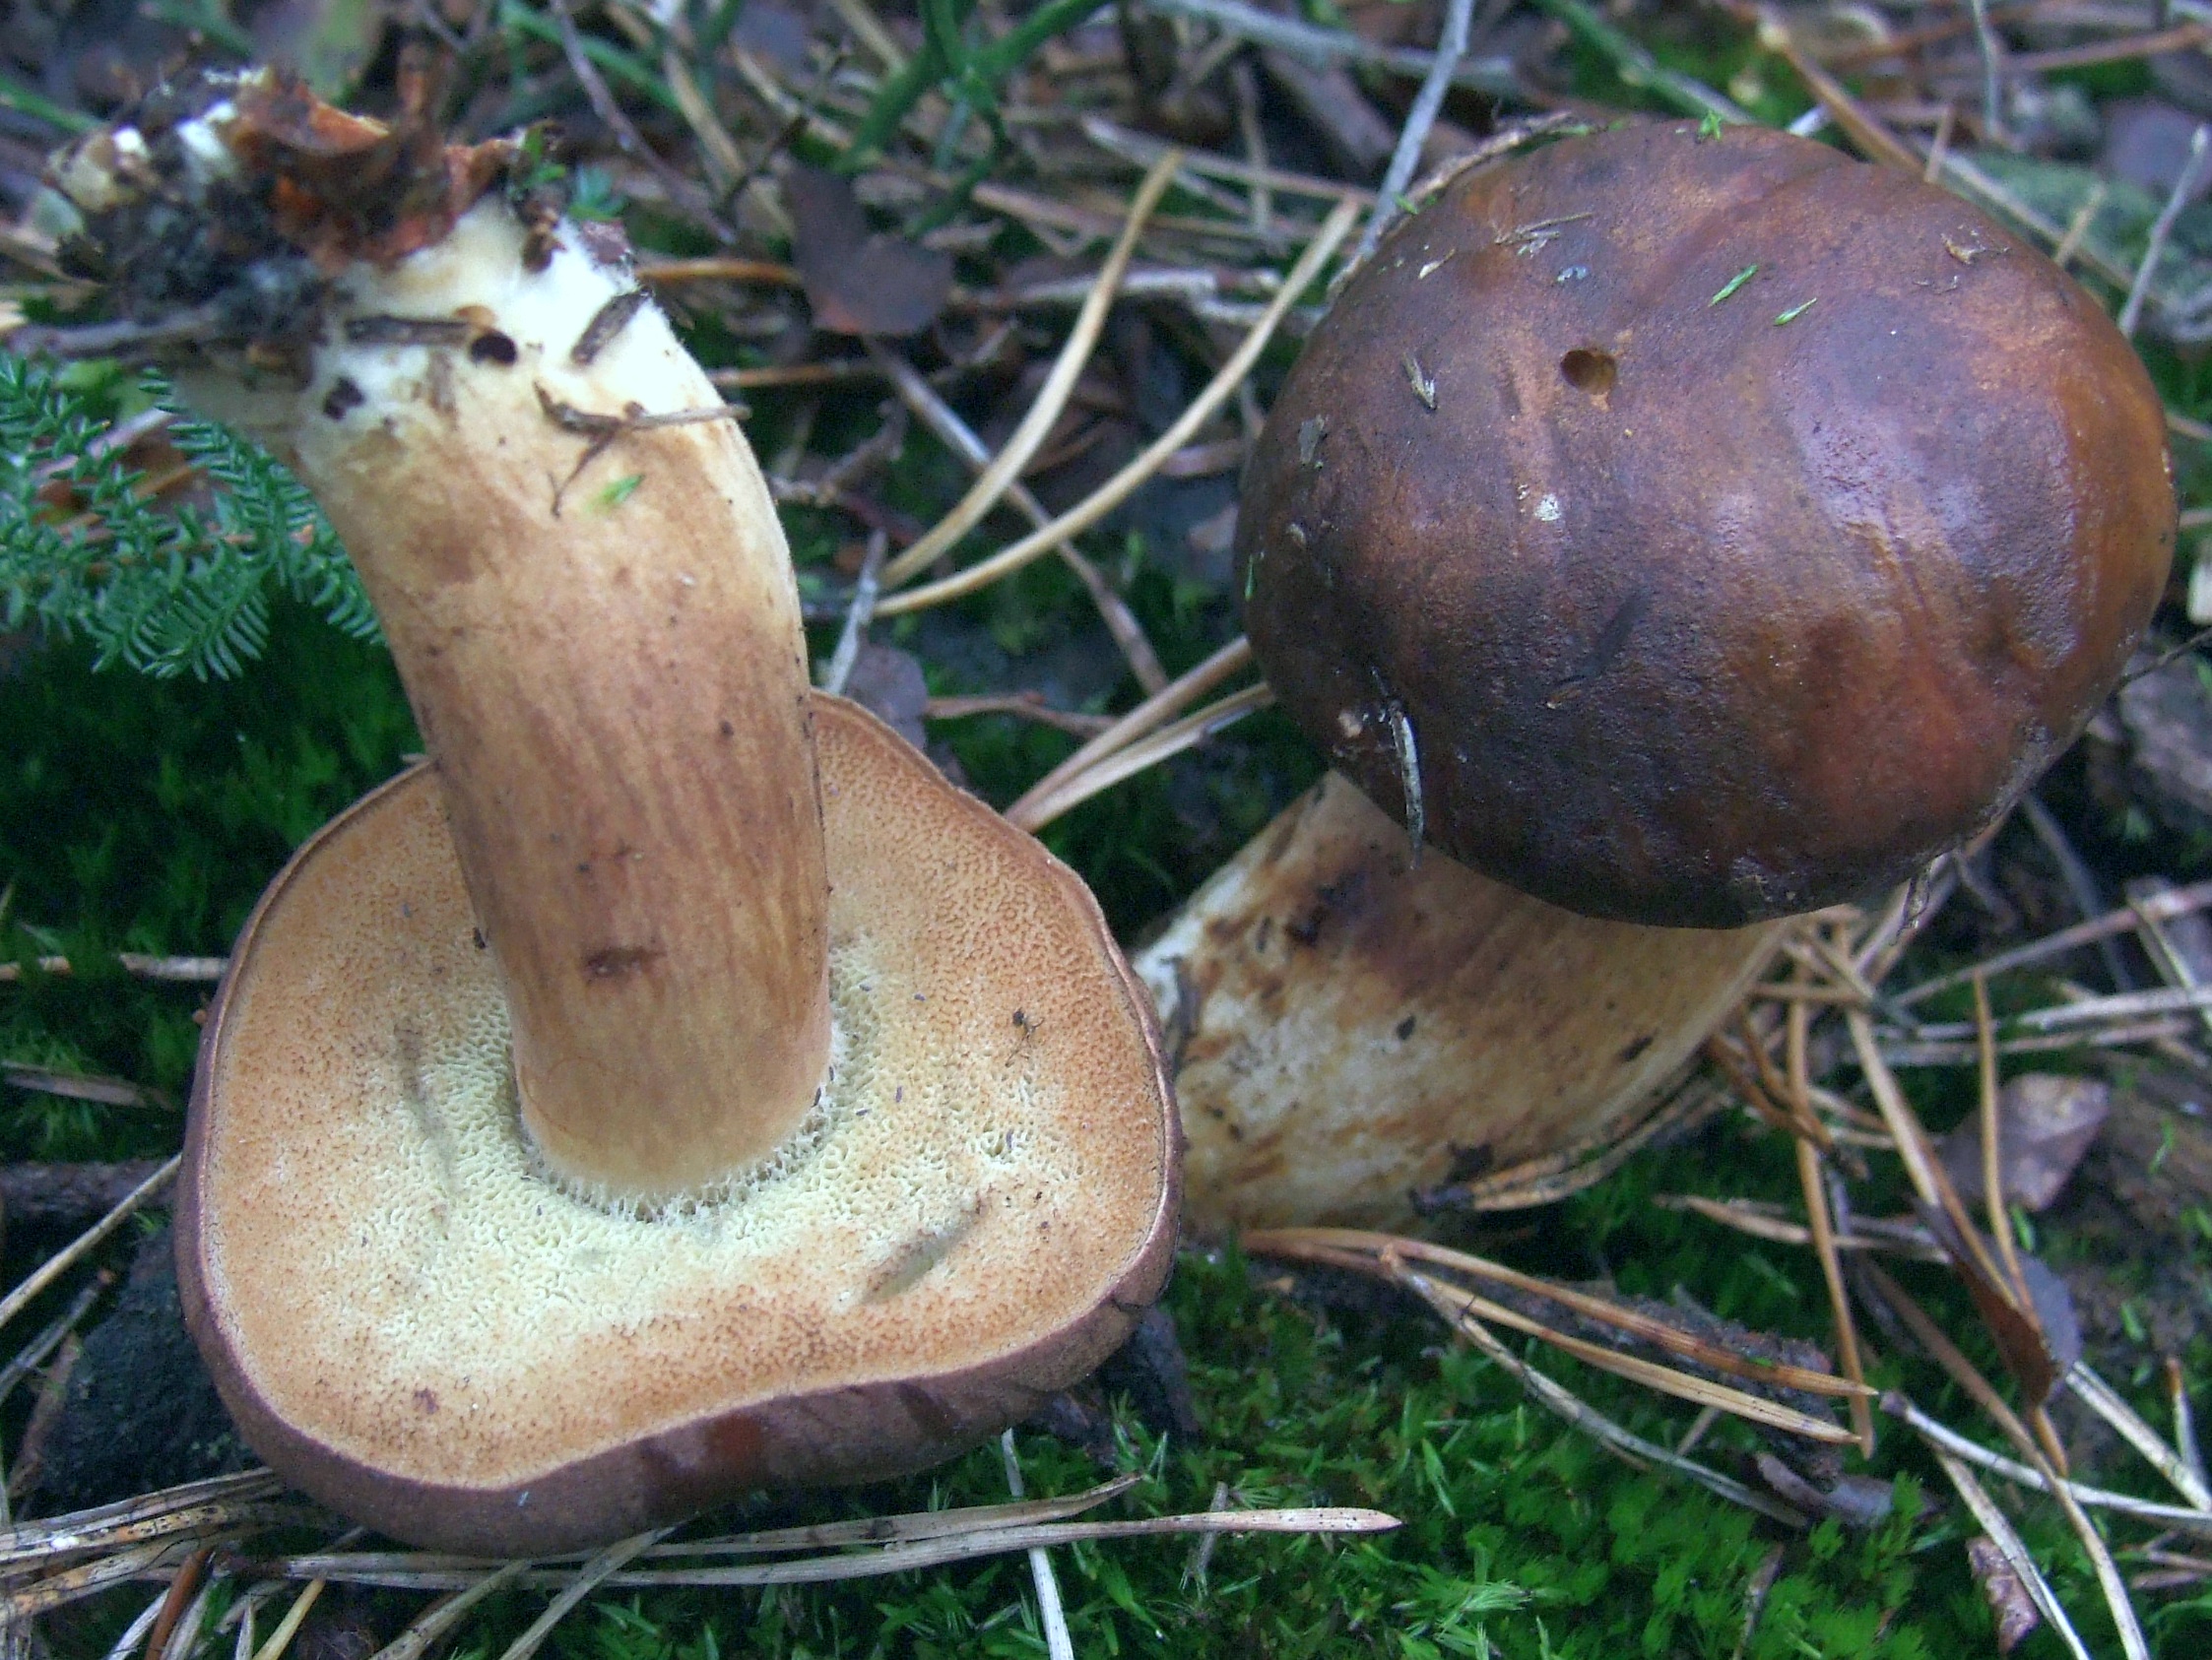
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Zdroj fotografie · CC BY-SA 4.0Imleria badia
Hlavné rozdiely
Hríb modrajúci (Cyanoboletus pulverulentus) reaguje na dotyk a poškodenie okamžitým, prudkým a intenzívnym sfarbením všetkých častí plodnice na sýtu tmavomodročiernu farbu. Pri Imleria badia je modranie menej rovnomerné a sústreďuje sa predovšetkým nad rúrkami a v hornej časti hlúbika.
FAQ
Je hríb modrajúci jedlá huba?
V starých atlasoch bol považovaný za jedlý, v súčasnosti sa však jeho konzumácia neodporúča. Výskumy preukázali schopnosť tohto druhu akumulovať arzén, preto autori publikácií neodporúčajú jeho konzumáciu.
Prečo sa neodporúča konzumácia tohto druhu?
Dôvodom sú výsledky výskumov preukazujúce vysokú akumuláciu arzénu v plodniciach. Z tohto dôvodu mykológovia a autori novších prác odporúčajú zdržať sa jeho zberu na kulinárske účely.
Aké sú hlavné poznávacie znaky tejto huby?
Póry a dužina po stlačení alebo rozkrojení veľmi rýchlo modrajú na tmavomodrú farbu. Rúrky sú žlté a hlúbik býva valcovitý alebo zúžený na báze, hore žltý a dole červenohnedý.
V akých biotopoch sa vyskytuje tento druh?
Rastie v listnatých, ihličnatých a zmiešaných lesoch. Možno ho stretnúť aj mimo lesa, napríklad v parkoch a záhradách.
V akých mesiacoch ho možno nájsť?
V literatúre uvádzané obdobie výskytu plodníc spadá medzi jún a november. Rôzne zdroje uvádzajú užšie rozpätia v závislosti od miestnych poveternostných podmienok.
Čím sa líši od suchohríba hnedého?
Hríb modrajúci modrie podstatne rýchlejšie a silnejšie, pričom nadobúda tmavý odtieň. Má tiež žlté póry a hlúbik v hornej časti žltý a smerom nadol červenohnedý, s možnou jemnou štruktúrou na vrchole.
Ako znie starý poľský názov tohto druhu?
V minulosti v poľskom písomníctve tento druh fungoval pod názvom borowik klinowotrzonowy. Aktuálny názov sinoborowik klinowotrzonowy odporúča Poľská mykologická spoločnosť (PTMyk).
Nadšenec
Spodná strana klobúka
- Dĺžka rúrok
- Dĺžka rúrok: do 15 mm.
Názvy a história
- Platný národný názov
- sinoborowik klinowotrzonowy
- Platný taxonomický názov
- Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Bývalé národné názvy
- borowik klinowotrzonowy, borowik wrażliwy, borowik siniejący, borowik czerniejący, borowik omglony, podgrzybek omglony
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách klobúk nadvihnite a prezrite usadeninu.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: hnedý.
- Odtieň výtrusného prachu
- Odtieň výtrusného prachu: Olivovohnedá.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: takmer vretenovitý. Tvar výtrusu: široko elipsoidný.
- Povrch výtrusu
- Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 10–15,5 µm, šírka 4–6 µm.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Ekológia a rozšírenie
- Pôdna reakcia
- Pôdna reakcia: kyslý.
Pôdna reakcia: neutrálna. - Listnaté stromy v okolí
- Listnaté stromy v okolí: Castanea sativa, Carpinus betulus, Fagus sylvatica, Quercus cerris, Quercus ilex, Quercus pubescens, Quercus robur alebo Tilia cordata.
Listnaté stromy v okolí: buk, lipa, gaštan jedlý alebo dub.
Listnaté stromy v okolí: Quercus coccifera, Quercus pyrenaica, Quercus suber, jelša, breza alebo Ostrya. - Ihličnaté stromy v okolí
- Ihličnaté stromy v okolí: Pinus nigra, Pinus pinea, Pinus sylvestris, Cedrus libani alebo jedľovec.
Ihličnaté stromy v okolí: jedľa alebo Picea abies. - Kry v okolí
- Kry v okolí: Corylus avellana.
- Mykorízni partneri
- Všeobecná väzba druhu: Mykorízni partneri: Castanea (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Carpinus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Corylus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Fagus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Quercus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Tilia (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Pinus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Cedrus (všeobecný zoznam partnerov).
Všeobecná väzba druhu: Mykorízni partneri: Tsuga (všeobecný zoznam partnerov). - Spôsob výživy
- Spôsob výživy: ektomykorízny.
História a kultúra
Taxonomická história hríba modrajúceho úzko súvisí s počiatkami modernej mykológie a má významný poľský historický akcent. Tento druh vedecky prvýkrát opísal v roku 1836 pod názvom Boletus pulverulentus lekár a mykológ Wilhelm Opatowski. Opis vyšiel v jeho uznávanej dizertačnej práci venovanej hríbovitým hubám (Commentatio historico-naturalis de familia Fungorum Boletoideorum) publikovanej v Berlíne. Druhový prívlastok pulverulentus (lat. poprášený, oinovatený) odkazoval na jemný, akoby prepudrovaný povrch mladých plodníc, čo sa premietlo aj do poľského bežného názvu.
Téměř dve storočia taxón figuroval v literatúre v široko poňatom rode Boletus. Zlom v jeho klasifikácii nastal v roku 2014, keď talianski bádatelia Matteo Gelardi, Alfredo Vizzini a Giampaolo Simonini uskutočnili fylogenetickú revíziu hríbovitých a vytvorili nový rod Cyanoboletus, do ktorého Opatowského druh presunuli. Názov nového rodu bol inšpirovaný veľkolepou, tmavomodrou farebnou reakciou oxidujúcej dužiny. Tieto zmeny odrážajú vývoj systematických poznatkov v európskom mykologickom písomníctve.
Jedlosť a bezpečnosť
Hríb siný (Cyanoboletus pulverulentus) je podmienečne jedlá huba, ktorá si od spotrebiteľa vyžaduje veľkú opatrnosť. V surovom stave je toxický a vyvoláva silné podráždenie tráviaceho traktu, ktoré sa prejavuje bolesťami brucha, nevoľnosťou a vracaním. Špecifickým zdravotným rizikom spojeným s týmto druhom je jeho jedinečná schopnosť hyperakumulácie arzénu z podložia, vrátane zlúčenín kyseliny dimetylarzínovej.
Nevyhnutnou podmienkou konzumácie je dôkladná tepelná úprava – varenie najmenej 15–20 minút so zliatím odvaru alebo dôkladné usmaženie. Napriek príprave sa neodporúča konzumovať ho vo veľkých porciách ani pravidelne; mal by sa považovať výlučne za hubu konzumovanú príležitostne.
Dužina surovej huby má príjemnú, jemnú, mierne orieškovú chuť a jemnú arómu. Pri tlaku a krájaní okamžite intenzívne modrie a potom tmavne, čo po uvarení dodáva jedlu takmer čiernu farbu.
Prístup ku konzumácii sa regionálne líši. V Poľsku, Česku a na Slovensku ho skúsení hubári radi zbierajú ako chutnú domácu hubu, zatiaľ čo v západnej Európe (okrem iného v Nemecku) hygienické inštitúcie z dôvodu obáv z obsahu arzénu odporúčajú zdržanlivosť a odrádzajú od jeho zberu.
Biotop a výskyt
Hríb modrajúci (Cyanoboletus pulverulentus) sa vyskytuje v Európe, kde osídľuje rôzne listnaté a zmiešané lesy. V poľskej mykobiote sa považuje za vzácny taxón a figuruje na národnom červenom zozname z roku 2006 so statusom R (vzácny – potenciálne ohrozený). Súčasné systematické a fylogenetické štúdie zreteľne odlišujú severoamerické záznamy od európskeho druhu, ktorého potvrdený areál zahŕňa európske krajiny.
Tento druh tvorí ektomykorízu predovšetkým s listnatými stromami. Najčastejšie sprevádza duby (Quercus), buky (Fagus sylvatica), hraby (Carpinus betulus) a lipy (Tilia). Ojedinele býva zaznamenaný pod ihličnatými stromami, ako sú smreky alebo borovice. Mimo lesov sa objavuje v mestských parkoch, záhradách a popri cestných alejach, pričom na juhu Európy sa vyskytuje okrem iného v teplomilných dúbravách a porastoch s gaštanom jedlým (Castanea sativa).
Uprednostňuje úrodné, hlinité alebo piesočnato-hlinité pôdy. Plodnice vyrastajú najradšej na obnaženej vlhkej zemi – v cestných priekopách, na svahoch lesných ciest a na miestach s tenkou vrstvou opadu. V Poľsku zdokumentované rozpätie výskytu plodníc v prehľadoch zahŕňa mesiace od júna do novembra (VI – XI), čo vymedzuje časový rámec zaznamenaných pozorovaní, nie empirické rozdelenie početnosti.
Bádateľ
Jedlosť a kuchyňa
Zdrojové zistenia: jedlosť, konzumácia a využitie
- Jedlosť
- Nejedlý — zdroj určenia
Źródło bez opisu bibliograficznego · img.icon[src="/mykoatlas/noedible.png"]@title: Nejedlá houba
Vedecké názvy a taxonómia
- Platný vedecký názov
Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Skoršie vedecké názvy
- Boletus pulverulentus Opat.[31]
Gatunek został po raz pierwszy opisany naukowo w 1836 roku przez polskiego lekarza i mykologa Wilhelma Bogusława Opatowskiego pod nazwą Boletus pulverulentus. Przez dziesięciolecia klasyfikowano go w rodzaju Boletus lub zaliczano do podrodzaju Xerocomus. W 2014 roku włoscy mykolodzy Matteo Gelardi, Alfredo Vizzini i Giampaolo Simonini, w oparciu o analizy filogenetyczne sekwencji DNA, wykazali jego ewolucyjną odrębność i utworzyli nowy rodzaj Cyanoboletus (z greckiego kyanos – ciemnoniebieski, modry), wyznaczając sinoborowika klinowotrzonowego jako gatunek typowy. Łaciński epitet pulverulentus pochodzi od słowa pulvis (pył, proch) i oznacza „oprószony” lub „omglony”, co odnosi się do matowej, delikatnie aksamitnej powłoki młodych kapeluszy.
- Zakres ujęcia taksonomicznego
Cyanoboletus pulverulentus wskazany jako aktualna nazwa na stronie PTMyk; źródłowe przypisanie nazw do rekordu, bez rozstrzygnięcia zgodności zakresów dawnych nazw.
[31]
Ekológia a rozšírenie
- Frekvencia výskytu
- Holandsko: Frekvencia výskytu: nehojný. [1]
Laboratórna diagnostika
Štruktúrované údaje
Bazídiá
- Počet výtrusov na bazídii
- Počet výtrusov na bazídii je 4. [27]
- Pracky
- Pracky: neprítomný. [29]
Hymeniálne cystidy
Pokožka klobúka
- Inkrustácia hýf pokožky
- Inkrustácia hýf pokožky: prítomný. [29]
- Farba pigmentu pokožky
- Farba pigmentu pokožky: hnedý. [29]
- Stavba pokožky klobúka
- Stavba pokožky klobúka: trichoderm. [29]
Stavba pokožky klobúka: palisadoderm. [22] - Tvar vrcholu koncovej bunky pokožky klobúka
- Tvar vrcholu koncovej bunky pokožky klobúka: zaoblený. [29]
- Dĺžka koncovej bunky pokožky klobúka
- Dĺžka koncovej bunky pokožky klobúka: 45–80 µm. [29]
- Tvar koncovej bunky pokožky klobúka
- Tvar koncovej bunky pokožky klobúka: valcovitý. [29]
- Šírka koncovej bunky pokožky klobúka
- Šírka koncovej bunky pokožky klobúka: 3–6,5 µm. [29]
Reakcie s činidlami
- Amyloidná reakcia
- Amyloidná reakcia: negatívny. [23]
Sekvencie DNA
- Sekvencia
Cyanoboletus pulverulentus; ITS; LT714707; PRM 944013
Výtrusy
- Poloha apikulu bazídiospóry
- Poloha apikulu bazídiospóry: bočný (výrazne). [23]
- Tvar vrcholu výtrusu
- Tvar vrcholu výtrusu: ostrý. [23]
- Farba výtrusov pod mikroskopom
- Farba výtrusov pod mikroskopom: bledožltý. [29]
- Pomer dĺžky a šírky výtrusu
- Pomer dĺžky a šírky výtrusu: 2,6–3. [29]
- Tvar výtrusu
- Tvar výtrusu: úzko mandľovitý. [23]
Tvar výtrusu: takmer vretenovitý. [17]
Tvar výtrusu: široko elipsoidný. [17] - Suprahilárna priehlbinka bazídiospóry
- Suprahilárna priehlbinka bazídiospóry: výrazné. [23]
- Povrch výtrusu
- Povrch výtrusu: hladký. [17]
- Hrúbka steny výtrusu
- Hrúbka steny výtrusu: hrubostenný. [29]
Dužina hymenofóru
- Typ tramy hymenofóru
- Typ tramy hymenofóru: bilaterálna (podtyp Boletus). [32]
Materiál a metódy výskumu
- Výsledky zaznamenané v zdrojoch — Dĺžka výtrusu
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 12,5–14,5 µm (skrajnie do 15,5 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 10–14 µm [30] - Výsledky zaznamenané v zdrojoch — Šírka výtrusu
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 4,2–5,2 µm (skrajnie do 5,4 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 4–6 µm [30]
Metody i zapisy źródłowe — European B. pulverulentus in a comparative paragraph; published European literature and author observations, without a named result-bearing voucher.
Liczba zarodników na jednej podstawce — zapis źródłowy: „European B. pulverulentus: the shorter and wider 4-spored basidia” [27]
Metody i zapisy źródłowe — C. pulverulentus PO-F2601, author-labelled SEM panels 4c–f.; C. pulverulentus PO-F2601, author-labelled KOH panel 4h.; Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.; Conditional author identification-key branch 3 for C. pulverulentus.
Numer okazu: PO-F2601.
Materiał źródłowy: C. pulverulentus PO-F2601, author-labelled KOH panel 4h.
Numer okazu: PO-F2601.
Materiał źródłowy: Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.
Materiał źródłowy: Conditional author identification-key branch 3 for C. pulverulentus.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Author-labelled SEM panels; section 2.2 lists instruments collectively, without assigning one to each panel.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Opis metody w źródle: Figure 4h; concentration/objective for this panel unreported.
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Cyanoboletus pulverulentus is macroscopically characterised by small to medium-sized basidiomes, growing solitary or in groups. The pileus is rather variable in colouration: yellow, buff brown, olivaceus brown to raspberry red, with a silky to slightly viscous surface and an acute pileus margin; the stipe is yellow, sometimes with brown or reddish colours in the lower part, rarely with a reticulum in the upper part [2]; tubes are lemon yellow; the context is yellow, sometimes reddish in the stipe of aged basidiomes, which turns intense blue with a turquoise tint (Figure 3). Microscopically, this species is characterised by narrow-amygdaliform, subfusiform-subamygdaliform, or amygdaliform basidiospores, often with a strongly lateralised apiculus (hilar appendix) and pronounced suprahilar depression, (10.91) 12.29 ± 0.9 (13.46) × (4.53) 4.87 ± 0.32 (5.39) µm, with the largest Q value of the European species of Cyanoboletus—(2.41) 2.53 ± 0.18 (2.73) (Figure 4c,d, Figure 5 and Figure 6). Thriving in acidic to neutral soils across temperate European and Macaronesian forests, mycorrhizal with broadleaves and conifers. It also differs from other European Cyanoboletus species and C. cyaneitinctus by arsenic hyperaccumulation ([40] and this study).” [23]
Kształt cystydy hymenialnej; Kształt szczytu zarodnika; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Obfitość gleocystyd hymenialnych; Obecność gleocystyd hymenialnych — zapis źródłowy: „3. Basidiospores often narrowly amygdaliform, with pronounced lateralised apiculus, pronounced suprahilar depression, and with relatively acute apex; gloeocystidia sparse………………………………………………………………………………………………………………………………………………………………………………………………………..C. pulverulentus” [23]
Obecność gleocystyd hymenialnych — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Metody i zapisy źródłowe — Explicit species-level anatomical attribution, not a result assigned to one voucher.
Typ tramy hymenoforu — zapis źródłowy: „The true boletoid trama … Boletus pulverulentus” [32]
Metody i zapisy źródłowe — Author species account and illustrated BAR2000072503; two listed collections are retained separately.
Pochodzenie materiału: Northern Spain: Cantabria and Navarra; exact two collection records retained separately..
Inkrustacja strzępek skórki — zapis źródłowy: „finamente incrustadas” [29]
Barwa pigmentu skórki — zapis źródłowy: „pigmento intracelular marrón” [29]
Organizacja skórki kapelusza — zapis źródłowy: „tricoderma” [29]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „elementos terminales … cilindráceos, con al ápice redondeado, de calibre 45–80 × 3–5.5 (6.5) µm” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „amarillo pálidas” [29]
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „12.5–14.5(15.5) × 4.2–5.2(5.4) µm; Q=2.6–2.9(3)” [29]
Grubość ściany zarodnika — zapis źródłowy: „paredes espesas” [29]
Metody i zapisy źródłowe — Boris Assyov authorial species account; no voucher-specific microscopic result supplied.
Organizacja skórki kapelusza — zapis źródłowy: „Pileipellis a palisadoderm of cylindrical, finely incrusted cells.” [22]
Metody i zapisy źródłowe — Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection.
Pochodzenie materiału: Netherlands, Valburg/Oosterhout and Bunde/Bunderbos..
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Spores (n=20) 10.0–14.0 × 4.0–6.0 µm” [30]
Metody i zapisy źródłowe — First Nature focal species spore description.
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Spores: Subfusiform to broadly ellipsoidal, smooth.” [17]
Overenie výskytu — rozsah a obmedzenia
Materiał: Polska kolekcja autora pod źródłową nazwą Boletus pulverulentus; nie przeniesiono danych azjatyckich segregatów.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[19]Spoločné obmedzenia interpretácie zdroja
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Rozsah spracovania
Pred dokončením vyžaduje záznam doplnenie alebo vyrovnanie.
- Hľadanie oblastí výskytu si vyžaduje vyúčtovanie.
- Väzby predchádzajúcich zistení si vyžadujú opätovné preverenie.
- Nové zdroje si vyžadujú vyhodnotenie informácií zaznamenaných počas prehľadu.
Právny základ a rozsah hodnotenia
Najdôležitejšie látky a ich účinok
Cyanoboletus pulverulentus wyróżnia się wśród wszystkich europejskich grzybów rurkowych wyjątkową zdolnością gromadzenia arsenu w owocnikach, co stało się przedmiotem szczegółowych badań chemicznych i toksykologicznych:
Hiperakumulacja arsenu i formy chemiczne (spesjacja): W badaniu analitycznym z 2018 roku (Bräuer i in., opublikowanym w czasopiśmie Food Chemistry) oznaczono całkowitą zawartość arsenu w 39 kolekcjach początkowo rozpoznanych jako C. pulverulentus (36 kolekcji z Czech oraz po jednej z Francji, Portugalii i USA). Całkowite stężenie arsenu wynosiło średnio 250 mg/kg suchej masy (odchylenie standardowe SD = 260 mg/kg), z medianą 160 mg/kg i zakresem od 2,4 do 1300 mg/kg suchej masy. Jedną kolekcję z USA autorzy zaliczyli później do innego, prawdopodobnie jeszcze nieopisanego gatunku z rodzaju Cyanoboletus; podane statystyki dotyczą pierwotnej grupy 39 kolekcji i nie były przeliczane osobno dla pozostałych 38.
Skład chemiczny związków arsenu i rozkład w owocniku: W wyciągach wodnych z badanych owocników kwas dimetyloarsenowy (DMA – dimethylarsinic acid) wykryto we wszystkich 39 kolekcjach (100%), gdzie stanowił on od 79% do 110% (i ponad 99% wykrytych frakcji rozpuszczalnych) wyekstrahowanego arsenu. Zastosowana analiza spesjacyjna poszczególnych form chemicznych dała sumaryczny wynik odpowiadający 43–110% oznaczenia arsenu całkowitego (średnio 71 ± 9%). Odsetek ten stanowi analityczne porównanie dwóch niezależnych procedur pomiarowych, a nie bezpośredni udział DMA w całym arsenie czy wyznaczoną dawkę dla konsumenta. W 8 z 39 przebadanych kolekcji stwierdzono ponadto śladowe ilości kwasu monometylarsenowego (MA, 0,04–0,19% wyekstrahowanego As). Zastosowana metoda analityczna nie wykryła obecności nieorganicznego arsenu (arsenianów ani arseninów), co oznacza poziom poniżej granicy wykrywalności aparatury, lecz nie dowodzi jego absolutnego braku. Skuteczność ekstrakcji laboratoryjnej była niepełna. W tym samym badaniu (Bräuer i in. 2018) analizowano również szczegółowy rozkład arsenu w poszczególnych częściach owocnika na przykładzie dwóch okazów (Fig. 3); wykazano, że większość zakumulowanego arsenu koncentrowała się w hymenium (warstwie rurek z zarodnikami). Wynik ten oparto na pomiarze dwóch owocników i nie stanowi on podstawy do wyznaczania procedur obróbki kulinarnej.
Wyniki badań toksykologicznych DMA i ocena ryzyka: Kwas dimetyloarsenowy jest organicznym związkiem arsenu, sklasyfikowanym przez Międzynarodową Agencję Badań nad Rakiem (IARC) w Grupie 2B jako substancja przypuszczalnie rakotwórcza dla ludzi. Klasyfikacja ta dotyczy czystego związku chemicznego, a nie całego grzyba czy pojedynczego posiłku. W osobnym badaniu laboratoryjnym (Yamanaka i in. 2001) podawanie samego związku DMA myszom drogą pokarmową doprowadziło do podwyższenia poziomu 8-oxo-dG (8-okso-2'-deoksyguanozyny – uznanego biomarkera oksydacyjnych uszkodzeń materiału genetycznego DNA) w skórze, płucach, wątrobie, pęcherzu moczowym oraz w moczu zwierząt. Jako potencjalny mechanizm uszkodzeń autorzy rozważali powstawanie wolnego rodnika dimetyloarsenowego. Badanie to dotyczyło podawania czystego związku modelowym gryzoniom, w związku z czym wynik ten nie stanowi bezpośredniego dowodu wystąpienia takich samych skutków po zjedzeniu owocnika grzyba przez człowieka.
W oparciu o Margines Ekspozycji (MoE) badacze (Bräuer i in. 2018) przeanalizowali scenariusze modelowe dla osoby o masie około 70 kg, szacując orientacyjne roczne spożycie świeżych owocników na poziomie około 90 g/rok przy medianie stężenia DMA (odpowiadającej ok. 12 mg As/kg świeżej masy), 12 g/rok przy stężeniu maksymalnym oraz 10 kg/rok przy stężeniu minimalnym. Są to czysto teoretyczne kalkulacje modelowe ryzyka, a nie normy dietetyczne czy progi bezpieczeństwa. W konkluzji zespół Simone Bräuer zalecił, aby gatunek ten nie był już rekomendowany jako jadalny, odradzając regularne spożywanie w ilości przekraczającej 90 g świeżej masy rocznie ze względu na potencjał rakotwórczy DMA. Z kolei autorzy śródziemnomorskiej rewizji taksonomicznej z 2026 r. (Biketova i in.) sformułowali bardziej kategoryczne stanowisko, zalecając całkowite powstrzymanie się od konsumpcji grzybów z rodzaju Cyanoboletus.
Biotop a výskyt
Biotop, oblasť a ročné obdobie
Sinoborowik klinowotrzonowy występuje w Europie i Makaronezji w strefie lasów umiarkowanych, tworząc mikoryzę z drzewami liściastymi (głównie dębami i bukami), a także sporadycznie z drzewami iglastymi (świerk). Spotykany jest w lasach liściastych, mieszanych, a także na obrzeżach dróg leśnych i w starych parkach. Preferuje gleby wilgotne, gliniaste, ilaste lub piaszczysto-gliniaste, o odczynie od słabo kwaśnego do obojętnego lub zasadowego. W opisach z Holandii wskazuje się na gleby wilgotne i umiarkowanie bogate w składniki odżywcze. W Polsce należy do grzybów rzadkich i rozproszonych; współczesne inwentaryzacje mikologiczne odnotowały jego występowanie m.in. w 2020 roku w rezerwacie przyrody „Paraszyńskie Wąwozy” na Pomorzu (w kwaśnej buczynie niżowej). Owocniki wyrastają od lata do jesieni (od maja/czerwca do listopada).
Potvrdený areál výskytu
Všetky oblasti potvrdené v uložených zdrojových údajoch.
| Krajina | Regióny a lokality | Rast plodníc | Zdroje |
|---|---|---|---|
| Andorra | V uložených údajoch neboli určené regióny | Neurčené |
|
| Rakúsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Belgicko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Bulharsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Švajčiarsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Česko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Nemecko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Dánsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Španielsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Francúzsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Veľká Británia | V uložených údajoch neboli určené regióny | VII–X |
|
| Grécko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Chorvátsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Maďarsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Írsko | V uložených údajoch neboli určené regióny | VII–X |
|
| Irán | V uložených údajoch neboli určené regióny | Neurčené |
|
| Taliansko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Litva | V uložených údajoch neboli určené regióny | Neurčené |
|
| Luxembursko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Moldavsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Severné Macedónsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Malta | V uložených údajoch neboli určené regióny | Neurčené |
|
| Holandsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Nórsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Poľsko | Bielovežský prales | VI–XI |
|
| Portugalsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Rumunsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Srbsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Rusko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Švédsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Slovinsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Slovensko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Turecko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Ukrajina | V uložených údajoch neboli určené regióny | Neurčené |
|
Zdroje
- NDFF Verspreidingsatlas: Cyanoboletus pulverulentus
- cyanoboletus_pulverulentus.deep20261014.collection-documentation
- Weryfikacja polskiego statusu prawnego sinoborowika, 15.10.2026
- Pat O’Reilly, Cyanoboletus pulverulentus — opis terenowy
- Pierwotny zapis źródłowy — P0: cyanoboletus_pulverulentus
- src-assyov-boletales-cyano
- src-biketova-2026
- Rozporządzenie Ministra Środowiska z 9 października 2014 r., Dz.U. 2014 poz. 1408.
- Obwieszczenie Ministra Zdrowia z 13 lutego 2026 r., Dz.U. 2026 poz. 258; jednolity tekst rozporządzenia w sprawie grzybów dopuszczonych do obrotu.
- src-gelardi-2013
- src-munoz-2022-cyano
- src-oolbekkink-1991
- PTMyk — sinoborowik klinowotrzonowy, nazwa aktualna i historyczne
- src-sutara-2005