
Nejedlý
Nastavte polohu, abyste viděli údaje pro svůj region.


Hřib modračka je houba z čeledi hřibovitých, nalézaná v listnatých, jehličnatých i smíšených lesích a také v parcích. Vytváří klobouk hnědé až olivově hnědé barvy a žluté póry. Třeň bývá válcovitý nebo se k bázi zužující, nahoře žlutý a v dolní části červenohnědý. Charakteristickým znakem je neobyčejně rychlé a silné modrání pórů a dužniny po otlačení. Dříve byl považován za jedlou houbu, v současnosti se nedoporučuje, neboť výzkumy prokázaly akumulaci arsenu.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
- Konzistence celé plodnice
- Konzistence celé plodnice: masitý.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: vyklenutý.
u starých plodnic: Tvar klobouku: plochý.
u zralých plodnic: Tvar klobouku: plochý. - Reliéf povrchu klobouku
- u zralých plodnic: Reliéf povrchu klobouku: hladký.
- Pokryv klobouku
- u mladých plodnic: Pokryv klobouku: sametový.
Pokryv klobouku: hedvábná.
u mladých plodnic: Pokryv klobouku: ojíněný.
u mladých plodnic: Pokryv klobouku: plstnatý.
u zralých plodnic: Pokryv klobouku: holá. - Lesk povrchu klobouku
- u mladých plodnic: Lesk povrchu klobouku: matný.
- Lepkavost a slizkost klobouku
- za mokra: Lepkavost a slizkost klobouku: lepkavý.
Lepkavost a slizkost klobouku: lepkavý. - Vzor praskání povrchu
- Vzor praskání povrchu: popraskaná, vzor neuveden.
- Barva klobouku
- Barva klobouku: hnědý.
Barva klobouku: karmínový.
Barva klobouku: tmavohnědý.
Barva klobouku: šedozelený.
Barva klobouku: olivový.
Barva klobouku: olivově hnědý.
Barva klobouku: růžový.
Barva klobouku: červenohnědý.
Barva klobouku: žlutý.
Barva klobouku: žlutohnědý.
Barva klobouku: žlutavý.
Barva klobouku: špinavě tmavohnědý. - Postavení okraje
- Postavení okraje: rovný.
u starých plodnic: Postavení okraje: ohnutý vzhůru.
u mladých plodnic: Postavení okraje: zahnutý dovnitř. - Obrys okraje klobouku
- Obrys okraje klobouku: laločnatý, zvlněný.
- Profil okraje klobouku
- Profil okraje klobouku: ostrý.
- Barevná reakce klobouku
- Barevná reakce klobouku: černý.
- Průměr klobouku
- Průměr klobouku je 40–120 mm.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: rourky.
Rourky u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: přirostlý k třeni (rourky).
- Sbíhavost hymenoforu na třeň
- u zralých plodnic: Sbíhavost hymenoforu na třeň: sbíhavý (rourky).
- Tvar pórů
- Tvar pórů: hranaté.
Tvar pórů: nepravidelný. - Barva pórů po poranění
- Barva pórů po poranění: modročerná.
- Barva rourek po poranění
- Barva rourek po poranění: modročerná.
- Přirozená barva pórů
- u zralých plodnic: Přirozená barva pórů: žlutoolivový.
Přirozená barva pórů: žlutý.
Přirozená barva pórů: oranžový. - Přirozená barva rourek
- Přirozená barva rourek: citronově žlutý.
u zralých plodnic: Přirozená barva rourek: žlutoolivový.
Třeň a báze
- Tvar třeně
- Tvar třeně: válcovitý nebo zužující se k bázi.
Tvar třeně: vřetenovitý. - Báze třeně
- Báze třeně: válcovitá.
Báze třeně: zužující se. - Barva třeně
- v horní části třeně: Barva třeně: sytě žlutý.
v dolní části třeně: Barva třeně: červenohnědý. - Reliéf povrchu třeně
- v horní části třeně: Reliéf povrchu třeně: síťovitá.
- Pokryv povrchu třeně
- v dolní části třeně: Pokryv povrchu třeně: ojíněný.
- Barva povrchu třeně po poranění
- Barva povrchu třeně po poranění: modročerná (povrch třeně).
- Délka třeně
- Délka třeně: 40–100 mm.
- Průměr třeně
- Průměr třeně: 5–25 mm.
- Zakřivení třeně
- Zakřivení třeně: ohnutý.
Dužnina
- Barva dužniny
- Barva dužniny: žlutý.
u starých plodnic: Barva dužniny: červený (dužnina třeně).
Barva dužniny: bělavá nebo žlutavý. - Pevnost dužniny
- u mladých plodnic: Pevnost dužniny: pevný.
- Chuť dužniny
- Chuť dužniny: kyselý.
Chuť dužniny: slabý.
Chuť dužniny: sladký. - Barva dužniny po poranění
- Barva dužniny po poranění: modročerná (dužnina klobouku).
Barva dužniny po poranění: modročerná (dužnina třeně). - Vůně dužniny
- Vůně dužniny: slabý.
Kde a kdy roste
- Stanoviště
- Stanoviště: listnatý les nebo jehličnatý les.
Stanoviště: listnatý les, smíšený les, park nebo zahrada.
Stanoviště: listnatý les. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě nebo ve skupinách.
- Četnost výskytu
- Doba růstu
- Plodnice se objevují od června do listopadu.
- Oblast výskytu
- Oblast výskytu: potvrzený.
Jedlost a kuchyně
- Jedlost
- Nejedlý
Právo
- Ochrana
- V Polsku hřib modračka nepodléhá zákonné druhové ochraně.
- Obchod
- Hřib modračka nefiguruje v polském seznamu hub povolených pro uvádění na trh a výrobu zpracovaných produktů.
Možná záměna
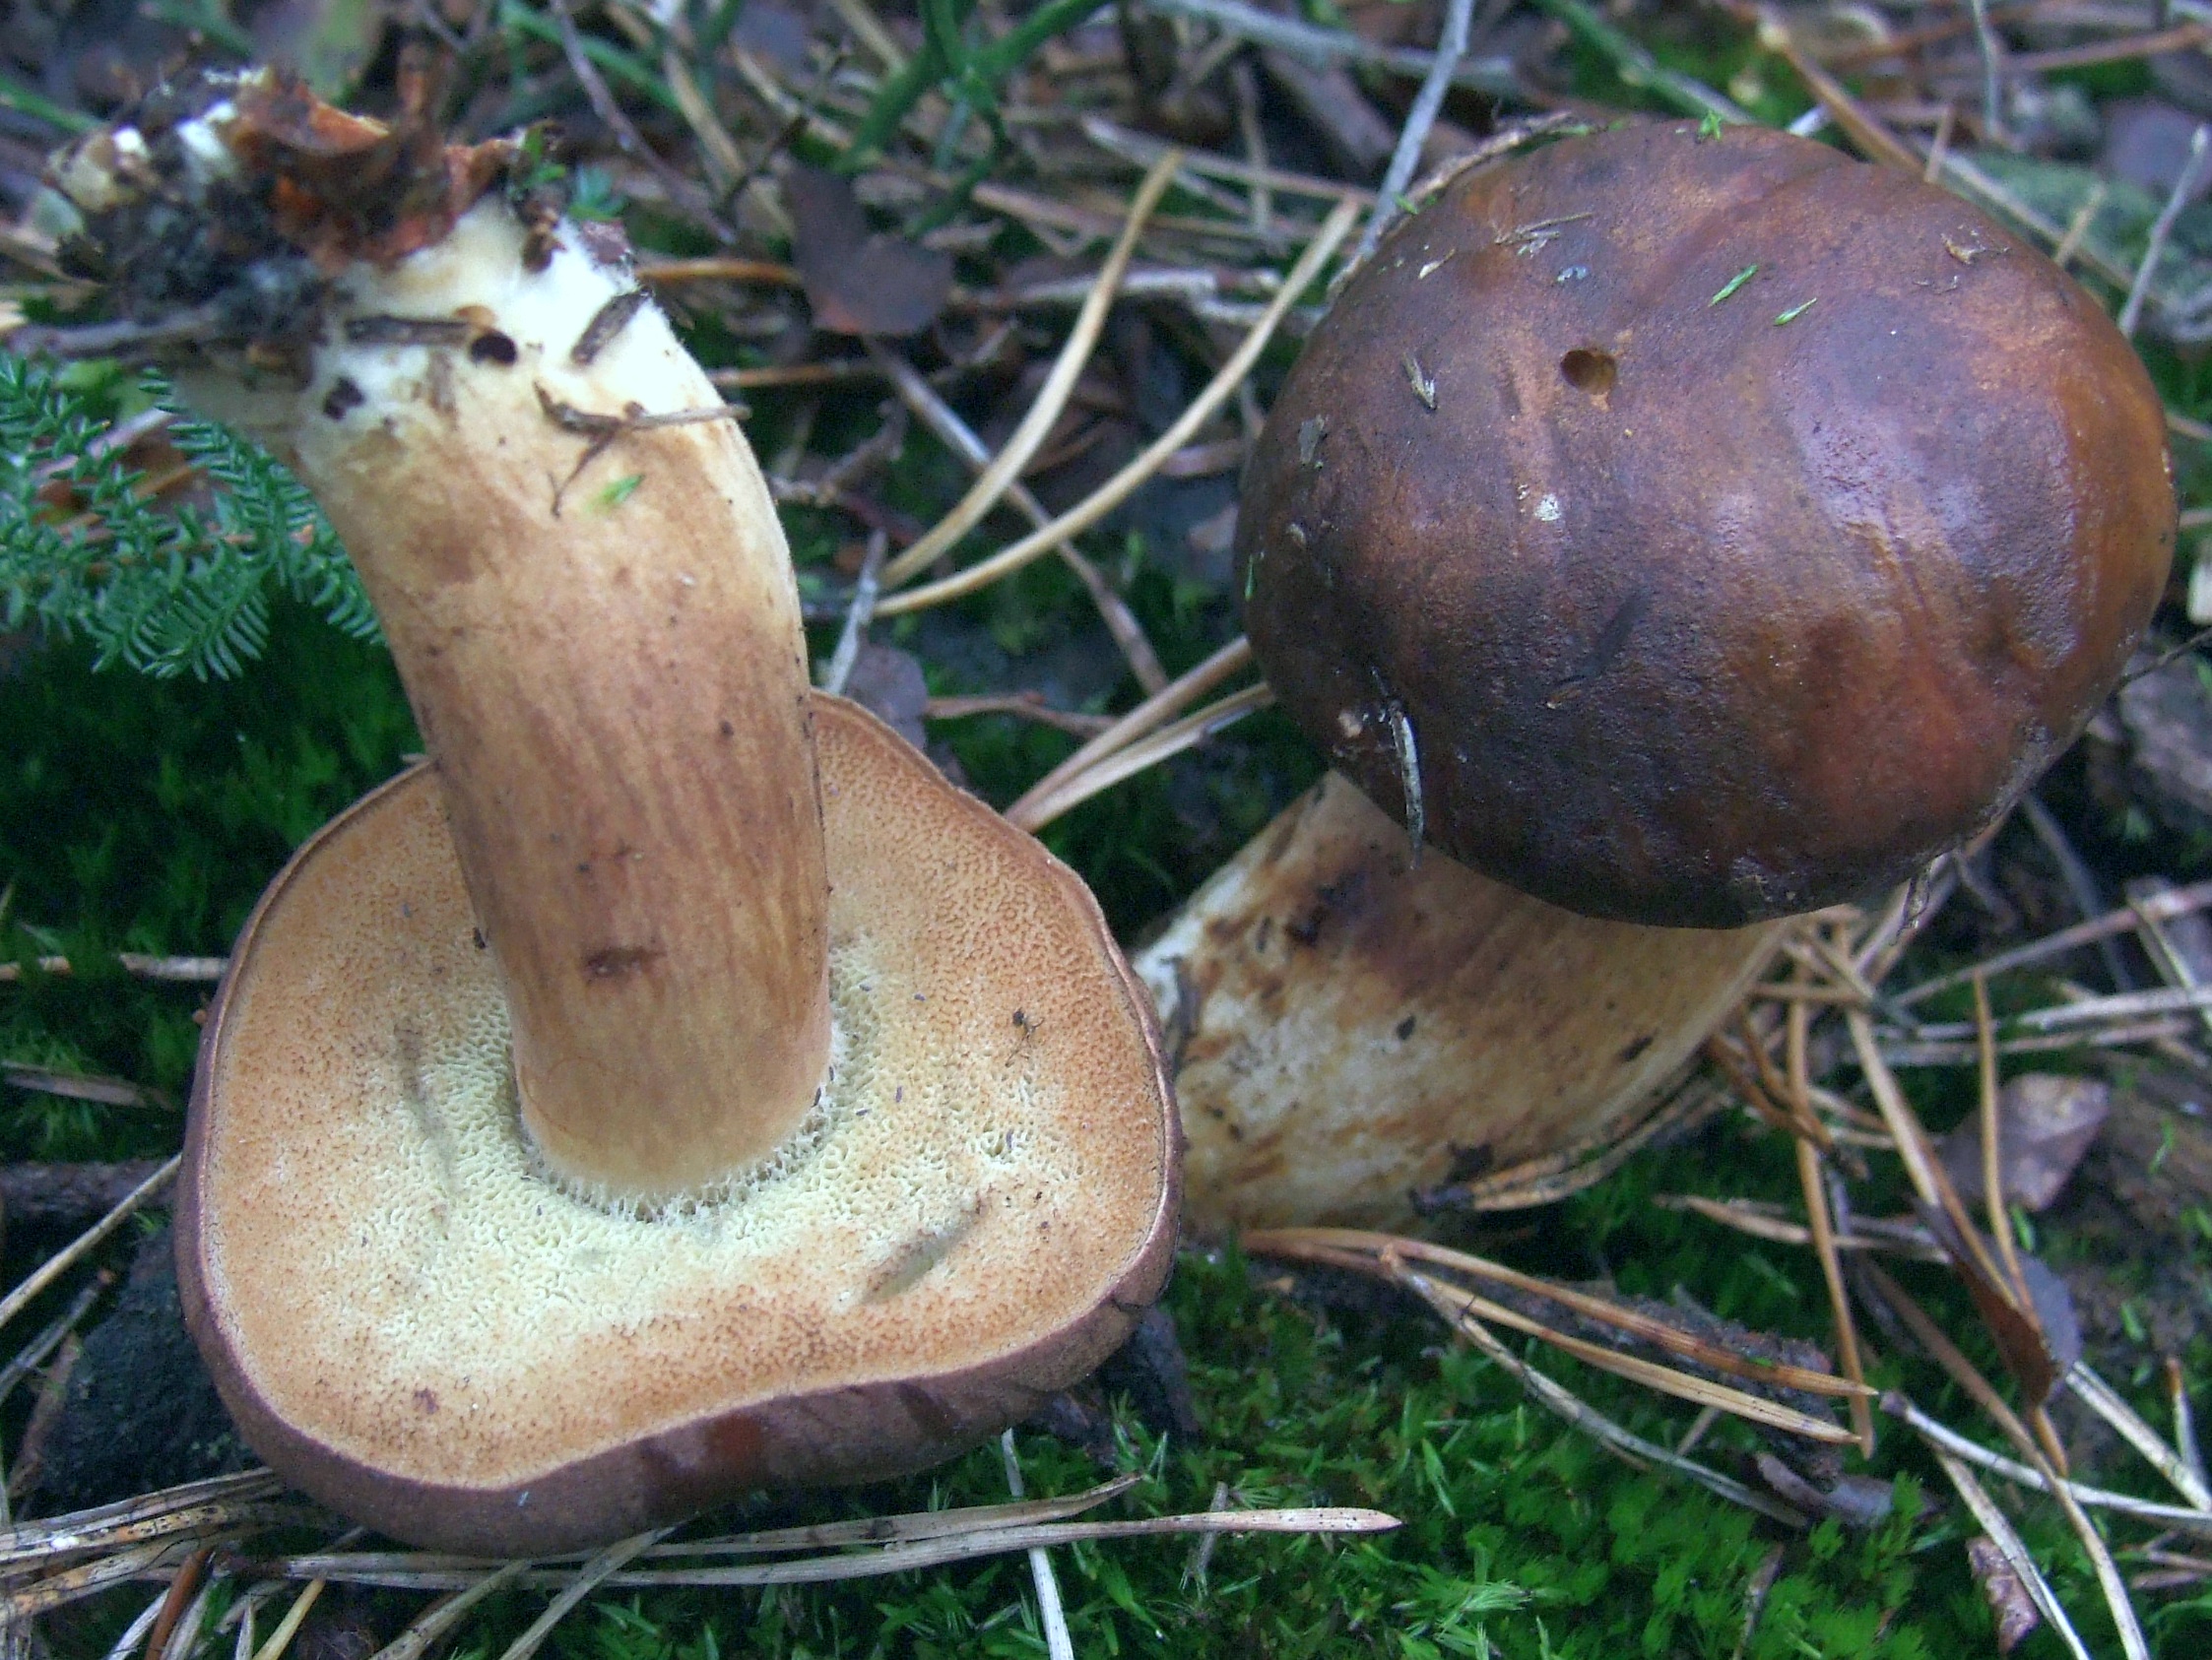
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Zdroj fotografie · CC BY-SA 4.0Imleria badia
Hlavní rozdíly
Hřib modračka (Cyanoboletus pulverulentus) reaguje na dotyk a poškození okamžitým, prudkým a intenzivním přebarvením všech částí plodnice do hluboké tmavomodročerné barvy. U Imleria badia je modrání méně rovnoměrné a soustřeďuje se především nad rourkami a v horní části třeně.
FAQ
Je hřib modračka jedlá houba?
Ve starých atlasech byl považován za jedlý, v současnosti se však jeho konzumace nedoporučuje. Výzkumy prokázaly schopnost tohoto druhu akumulovat arsen, proto autoři publikací jeho konzumaci nedoporučují.
Proč se konzumace tohoto druhu nedoporučuje?
Důvodem jsou výsledky výzkumů prokazující vysokou akumulaci arsenu v plodnicích. Z tohoto důvodu mykologové a autoři novějších prací doporučují zdržet se jeho sběru pro kulinářské účely.
Jaké jsou hlavní rozpoznávací znaky této houby?
Póry a dužnina po otlačení nebo rozkrojení velmi rychle modrají do tmavomodré barvy. Rourky jsou žluté a třeň bývá válcovitý nebo na bázi zúžený, nahoře žlutý a dole červenohnědý.
V jakých biotopech se tento druh vyskytuje?
Roste v listnatých, jehličnatých i smíšených lesích. Lze jej nalézt také mimo les, například v parcích a zahradách.
V jakých měsících se s ním lze setkat?
V literatuře uváděná doba výskytu plodnic spadá mezi červen a listopad. Různé zdroje uvádějí užší rozmezí v závislosti na místních povětrnostních podmínkách.
Čím se liší od hřibu hnědého?
Hřib modračka modrá podstatně rychleji a silněji, přičemž získává tmavý odstín. Má také žluté póry a třeň nahoře žlutý a směrem dolů červenohnědý, s možnou jemnou strukturou na vrcholu.
Jak zní starý polský název tohoto druhu?
Dříve v polské literatuře tento druh figuroval pod názvem borowik klinowotrzonowy. Aktuální název sinoborowik klinowotrzonowy doporučuje Polská mykologická společnost (PTMyk).
Nadšenec
Spodní strana klobouku
- Délka rourek
- Délka rourek: do 15 mm.
Názvy a historie
- Platné národní jméno
- sinoborowik klinowotrzonowy
- Platné vědecké jméno
- Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Další národní jména
- modrák, inkoustový hřib, hřib modračka, modračka
- Dřívější národní jména
- borowik klinowotrzonowy, borowik wrażliwy, borowik siniejący, borowik czerniejący, borowik omglony, podgrzybek omglony
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách klobouk zvedněte a prohlédněte usazeninu.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: hnědý.
- Odstín výtrusného prachu
- Odstín výtrusného prachu: olivově hnědý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: téměř vřetenovitý. Tvar výtrusu: široce elipsoidní.
- Povrch výtrusu
- Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 10–15,5 µm, šířka 4–6 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Půdní reakce
- Půdní reakce: kyselý.
Půdní reakce: neutrální. - Listnaté stromy v okolí
- Listnaté stromy v okolí: kaštanovník jedlý, habr obecný, buk lesní, dub cer, dub cesmínovitý, dub pýřitý, dub letní nebo lípa srdčitá.
Listnaté stromy v okolí: buk, lípa, kaštanovník jedlý nebo dub.
Listnaté stromy v okolí: dub kermesový, dub pyrenejský, dub korkový, olše, bříza nebo habrovec. - Jehličnaté stromy v okolí
- Jehličnaté stromy v okolí: borovice černá, borovice pinie, borovice lesní, cedr libanonský nebo jedlovec.
Jehličnaté stromy v okolí: jedle nebo smrk ztepilý. - Keře v okolí
- Keře v okolí: líska obecná.
- Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: kaštanovníky (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: habry (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: líska (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: buky (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: duby (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: lípa (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: borovice (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: cedr (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: jedlovce (obecný seznam partnerů). - Způsob výživy
- Způsob výživy: ektomykorhizní.
Historie a kultura
Taxonomická historie hřibu modračky úzce souvisí s počátky novodobé mykologie a nese významnou polskou historickou stopu. Tento druh poprvé vědecky popsal v roce 1836 pod názvem Boletus pulverulentus lékař a mykolog Wilhelm Opatowski. Popis vyšel v jeho uznávané disertační práci věnované hřibovitým houbám (Commentatio historico-naturalis de familia Fungorum Boletoideorum) vydané v Berlíně. Druhové epiteton pulverulentus (latinsky poprášený, pomoučený) odkazovalo na jemný, jakoby napudrovaný povrch mladých plodnic, což se odrazilo i v polském lidovém názvu.
Téměř dvě století taxon v literatuře fungoval v široce pojatém rodu Boletus. Zlom v jeho klasifikaci nastal v roce 2014, kdy italští badatelé Matteo Gelardi, Alfredo Vizzini a Giampaolo Simonini provedli fylogenetickou revizi hřibovitých a vytvořili nový rod Cyanoboletus, do kterého Opatowského druh přeřadili. Název nového rodu byl inspirován velkolepou, tmavomodrou barevnou reakcí oxidující dužniny. Tyto změny odrážejí vývoj systematických poznatků v evropské mykologické literatuře.
Jedlost a bezpečnost
Hřib modračka (Cyanoboletus pulverulentus) je podmíněně jedlá houba, která vyžaduje od spotřebitele značnou opatrnost. V syrovém stavu je toxický a vyvolává silné podráždění trávicího traktu, projevující se bolestmi břicha, nevolností a zvracením. Zvláštním zdravotním rizikem spojeným s tímto druhem je jeho jedinečná schopnost hyperakumulace arsenu z půdy, včetně sloučenin kyseliny dimethylarsinové.
Nezbytnou podmínkou pro konzumaci je důkladná tepelná úprava – vaření po dobu nejméně 15–20 minut se slitím vývaru nebo důkladné osmažení. I přes tuto přípravu se nedoporučuje konzumovat jej ve velkých porcích ani pravidelně; měl by být považován výhradně za houbu konzumovanou příležitostně.
Dužnina syrové houby má příjemnou, mírnou, lehce oříškovou chuť a jemné aroma. Působením tlaku a řezání okamžitě intenzivně modrá a následně tmavne, což po uvaření dává pokrmu téměř černou barvu.
Přístup ke konzumaci se regionálně liší. V Polsku, Česku a na Slovensku bývá zkušenými houbaři ochotně sbírán jako chutná domácí houba, zatímco v západní Evropě (mimo jiné v Německu) hygienické instituce z důvodu obav z obsahu arsenu doporučují zdrženlivost a odrazují od jeho sběru.
Stanoviště a výskyt
Hřib modračka (Cyanoboletus pulverulentus) se vyskytuje v Evropě, kde osidluje různé listnaté a smíšené lesy. V polské mykobiótě je považován za vzácný taxon a je uveden v národním červeném seznamu z roku 2006 se statusem R (vzácný – potenciálně ohrožený). Současné systematické a fylogenetické studie zřetelně odlišují severoamerické záznamy od evropského druhu, jehož potvrzený areál zahrnuje evropské země.
Tento druh tvoří ektomykorhizu především s listnatými stromy. Nejčastěji doprovází duby (Quercus), buky (Fagus sylvatica), habry (Carpinus betulus) a lípy (Tilia). Sporadicky bývá zaznamenáván pod jehličnatými stromy, jako jsou smrky nebo borovice. Mimo les se objevuje v městských parcích, zahradách a podél cest, v jižní Evropě se vyskytuje mimo jiné v teplomilných doubravách a porostech s kaštanovníkem setým (Castanea sativa).
Preferuje úrodné, hlinité nebo písčitohlinité půdy. Plodnice vyrůstají nejraději na holé, vlhké zemi – v silničních příkopech, na svazích lesních cest a na místech s tenkou vrstvou opadu. V Polsku zahrnuje zdokumentované rozpětí výskytu plodnic v přehledech měsíce od června do listopadu (VI–XI), což vymezuje časový rámec zaznamenaných pozorování, nikoli empirické rozdělení početnosti.
Výzkumník
Jedlost a kuchyně
Zdrojová zjištění: jedlost, konzumace a využití
- Jedlost
- Nejedlý — zdroj určení
Źródło bez opisu bibliograficznego · img.icon[src="/mykoatlas/noedible.png"]@title: Nejedlá houba
Vědecké názvy a taxonomie
- Platné vědecké jméno
Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Dřívější vědecká jména
- Boletus pulverulentus Opat.[31]
Gatunek został po raz pierwszy opisany naukowo w 1836 roku przez polskiego lekarza i mykologa Wilhelma Bogusława Opatowskiego pod nazwą Boletus pulverulentus. Przez dziesięciolecia klasyfikowano go w rodzaju Boletus lub zaliczano do podrodzaju Xerocomus. W 2014 roku włoscy mykolodzy Matteo Gelardi, Alfredo Vizzini i Giampaolo Simonini, w oparciu o analizy filogenetyczne sekwencji DNA, wykazali jego ewolucyjną odrębność i utworzyli nowy rodzaj Cyanoboletus (z greckiego kyanos – ciemnoniebieski, modry), wyznaczając sinoborowika klinowotrzonowego jako gatunek typowy. Łaciński epitet pulverulentus pochodzi od słowa pulvis (pył, proch) i oznacza „oprószony” lub „omglony”, co odnosi się do matowej, delikatnie aksamitnej powłoki młodych kapeluszy.
- Zakres ujęcia taksonomicznego
Cyanoboletus pulverulentus wskazany jako aktualna nazwa na stronie PTMyk; źródłowe przypisanie nazw do rekordu, bez rozstrzygnięcia zgodności zakresów dawnych nazw.
[31]
Ekologie a rozšíření
- Četnost výskytu
- Nizozemsko: Četnost výskytu: nehojný. [1]
Laboratorní diagnostika
Strukturované údaje
Bazidie
- Počet výtrusů na bazidii
- Počet výtrusů na bazidii je 4. [27]
- Přezky
- Přezky: nepřítomný. [29]
Hymeniální cystidy
Pokožka klobouku
- Inkrustace hyf pokožky
- Inkrustace hyf pokožky: přítomný. [29]
- Barva pigmentu pokožky
- Barva pigmentu pokožky: hnědý. [29]
- Stavba pokožky klobouku
- Stavba pokožky klobouku: trichoderm. [29]
Stavba pokožky klobouku: palisadoderm. [22] - Tvar vrcholu koncové buňky pokožky klobouku
- Tvar vrcholu koncové buňky pokožky klobouku: zaoblený. [29]
- Délka koncové buňky pokožky klobouku
- Délka koncové buňky pokožky klobouku: 45–80 µm. [29]
- Tvar koncové buňky pokožky klobouku
- Tvar koncové buňky pokožky klobouku: válcovitý. [29]
- Šířka koncové buňky pokožky klobouku
- Šířka koncové buňky pokožky klobouku: 3–6,5 µm. [29]
Reakce s činidly
- Amyloidní reakce
- Amyloidní reakce: negativní. [23]
Sekvence DNA
- Sekvence
Cyanoboletus pulverulentus; ITS; LT714707; PRM 944013
Výtrusy
- Poloha hilárního výběžku bazidiospory
- Poloha hilárního výběžku bazidiospory: boční (výrazně). [23]
- Tvar vrcholu výtrusu
- Tvar vrcholu výtrusu: ostrý. [23]
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: bledě žlutý. [29]
- Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 2,6–3. [29]
- Tvar výtrusu
- Tvar výtrusu: úzce mandlovitý. [23]
Tvar výtrusu: téměř vřetenovitý. [17]
Tvar výtrusu: široce elipsoidní. [17] - Suprahilární deprese bazidiospory
- Suprahilární deprese bazidiospory: výrazné. [23]
- Povrch výtrusu
- Povrch výtrusu: hladký. [17]
- Tloušťka stěny výtrusu
- Tloušťka stěny výtrusu: tlustostěnný. [29]
Trama hymenoforu
- Typ tramy hymenoforu
- Typ tramy hymenoforu: bilaterální (podtyp Boletus). [32]
Materiál a metody výzkumu
- Výsledky zaznamenané v pramenech — Délka výtrusu
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 12,5–14,5 µm (skrajnie do 15,5 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 10–14 µm [30] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 4,2–5,2 µm (skrajnie do 5,4 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 4–6 µm [30]
Metody i zapisy źródłowe — European B. pulverulentus in a comparative paragraph; published European literature and author observations, without a named result-bearing voucher.
Liczba zarodników na jednej podstawce — zapis źródłowy: „European B. pulverulentus: the shorter and wider 4-spored basidia” [27]
Metody i zapisy źródłowe — C. pulverulentus PO-F2601, author-labelled SEM panels 4c–f.; C. pulverulentus PO-F2601, author-labelled KOH panel 4h.; Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.; Conditional author identification-key branch 3 for C. pulverulentus.
Numer okazu: PO-F2601.
Materiał źródłowy: C. pulverulentus PO-F2601, author-labelled KOH panel 4h.
Numer okazu: PO-F2601.
Materiał źródłowy: Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.
Materiał źródłowy: Conditional author identification-key branch 3 for C. pulverulentus.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Author-labelled SEM panels; section 2.2 lists instruments collectively, without assigning one to each panel.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Opis metody w źródle: Figure 4h; concentration/objective for this panel unreported.
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Cyanoboletus pulverulentus is macroscopically characterised by small to medium-sized basidiomes, growing solitary or in groups. The pileus is rather variable in colouration: yellow, buff brown, olivaceus brown to raspberry red, with a silky to slightly viscous surface and an acute pileus margin; the stipe is yellow, sometimes with brown or reddish colours in the lower part, rarely with a reticulum in the upper part [2]; tubes are lemon yellow; the context is yellow, sometimes reddish in the stipe of aged basidiomes, which turns intense blue with a turquoise tint (Figure 3). Microscopically, this species is characterised by narrow-amygdaliform, subfusiform-subamygdaliform, or amygdaliform basidiospores, often with a strongly lateralised apiculus (hilar appendix) and pronounced suprahilar depression, (10.91) 12.29 ± 0.9 (13.46) × (4.53) 4.87 ± 0.32 (5.39) µm, with the largest Q value of the European species of Cyanoboletus—(2.41) 2.53 ± 0.18 (2.73) (Figure 4c,d, Figure 5 and Figure 6). Thriving in acidic to neutral soils across temperate European and Macaronesian forests, mycorrhizal with broadleaves and conifers. It also differs from other European Cyanoboletus species and C. cyaneitinctus by arsenic hyperaccumulation ([40] and this study).” [23]
Kształt cystydy hymenialnej; Kształt szczytu zarodnika; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Obfitość gleocystyd hymenialnych; Obecność gleocystyd hymenialnych — zapis źródłowy: „3. Basidiospores often narrowly amygdaliform, with pronounced lateralised apiculus, pronounced suprahilar depression, and with relatively acute apex; gloeocystidia sparse………………………………………………………………………………………………………………………………………………………………………………………………………..C. pulverulentus” [23]
Obecność gleocystyd hymenialnych — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Metody i zapisy źródłowe — Explicit species-level anatomical attribution, not a result assigned to one voucher.
Typ tramy hymenoforu — zapis źródłowy: „The true boletoid trama … Boletus pulverulentus” [32]
Metody i zapisy źródłowe — Author species account and illustrated BAR2000072503; two listed collections are retained separately.
Pochodzenie materiału: Northern Spain: Cantabria and Navarra; exact two collection records retained separately..
Inkrustacja strzępek skórki — zapis źródłowy: „finamente incrustadas” [29]
Barwa pigmentu skórki — zapis źródłowy: „pigmento intracelular marrón” [29]
Organizacja skórki kapelusza — zapis źródłowy: „tricoderma” [29]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „elementos terminales … cilindráceos, con al ápice redondeado, de calibre 45–80 × 3–5.5 (6.5) µm” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „amarillo pálidas” [29]
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „12.5–14.5(15.5) × 4.2–5.2(5.4) µm; Q=2.6–2.9(3)” [29]
Grubość ściany zarodnika — zapis źródłowy: „paredes espesas” [29]
Metody i zapisy źródłowe — Boris Assyov authorial species account; no voucher-specific microscopic result supplied.
Organizacja skórki kapelusza — zapis źródłowy: „Pileipellis a palisadoderm of cylindrical, finely incrusted cells.” [22]
Metody i zapisy źródłowe — Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection.
Pochodzenie materiału: Netherlands, Valburg/Oosterhout and Bunde/Bunderbos..
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Spores (n=20) 10.0–14.0 × 4.0–6.0 µm” [30]
Metody i zapisy źródłowe — First Nature focal species spore description.
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Spores: Subfusiform to broadly ellipsoidal, smooth.” [17]
Ověření výskytu — rozsah a omezení
Materiał: Polska kolekcja autora pod źródłową nazwą Boletus pulverulentus; nie przeniesiono danych azjatyckich segregatów.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[19]Společná omezení záznamu ze zdroje
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje dořešení.
- Vazby dřívějších zjištění vyžadují opětovnou kontrolu.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Právní základ a rozsah hodnocení
Předpisy pro lokalitu: Polsko
Nejdůležitější látky a jejich účinek
Cyanoboletus pulverulentus wyróżnia się wśród wszystkich europejskich grzybów rurkowych wyjątkową zdolnością gromadzenia arsenu w owocnikach, co stało się przedmiotem szczegółowych badań chemicznych i toksykologicznych:
Hiperakumulacja arsenu i formy chemiczne (spesjacja): W badaniu analitycznym z 2018 roku (Bräuer i in., opublikowanym w czasopiśmie Food Chemistry) oznaczono całkowitą zawartość arsenu w 39 kolekcjach początkowo rozpoznanych jako C. pulverulentus (36 kolekcji z Czech oraz po jednej z Francji, Portugalii i USA). Całkowite stężenie arsenu wynosiło średnio 250 mg/kg suchej masy (odchylenie standardowe SD = 260 mg/kg), z medianą 160 mg/kg i zakresem od 2,4 do 1300 mg/kg suchej masy. Jedną kolekcję z USA autorzy zaliczyli później do innego, prawdopodobnie jeszcze nieopisanego gatunku z rodzaju Cyanoboletus; podane statystyki dotyczą pierwotnej grupy 39 kolekcji i nie były przeliczane osobno dla pozostałych 38.
Skład chemiczny związków arsenu i rozkład w owocniku: W wyciągach wodnych z badanych owocników kwas dimetyloarsenowy (DMA – dimethylarsinic acid) wykryto we wszystkich 39 kolekcjach (100%), gdzie stanowił on od 79% do 110% (i ponad 99% wykrytych frakcji rozpuszczalnych) wyekstrahowanego arsenu. Zastosowana analiza spesjacyjna poszczególnych form chemicznych dała sumaryczny wynik odpowiadający 43–110% oznaczenia arsenu całkowitego (średnio 71 ± 9%). Odsetek ten stanowi analityczne porównanie dwóch niezależnych procedur pomiarowych, a nie bezpośredni udział DMA w całym arsenie czy wyznaczoną dawkę dla konsumenta. W 8 z 39 przebadanych kolekcji stwierdzono ponadto śladowe ilości kwasu monometylarsenowego (MA, 0,04–0,19% wyekstrahowanego As). Zastosowana metoda analityczna nie wykryła obecności nieorganicznego arsenu (arsenianów ani arseninów), co oznacza poziom poniżej granicy wykrywalności aparatury, lecz nie dowodzi jego absolutnego braku. Skuteczność ekstrakcji laboratoryjnej była niepełna. W tym samym badaniu (Bräuer i in. 2018) analizowano również szczegółowy rozkład arsenu w poszczególnych częściach owocnika na przykładzie dwóch okazów (Fig. 3); wykazano, że większość zakumulowanego arsenu koncentrowała się w hymenium (warstwie rurek z zarodnikami). Wynik ten oparto na pomiarze dwóch owocników i nie stanowi on podstawy do wyznaczania procedur obróbki kulinarnej.
Wyniki badań toksykologicznych DMA i ocena ryzyka: Kwas dimetyloarsenowy jest organicznym związkiem arsenu, sklasyfikowanym przez Międzynarodową Agencję Badań nad Rakiem (IARC) w Grupie 2B jako substancja przypuszczalnie rakotwórcza dla ludzi. Klasyfikacja ta dotyczy czystego związku chemicznego, a nie całego grzyba czy pojedynczego posiłku. W osobnym badaniu laboratoryjnym (Yamanaka i in. 2001) podawanie samego związku DMA myszom drogą pokarmową doprowadziło do podwyższenia poziomu 8-oxo-dG (8-okso-2'-deoksyguanozyny – uznanego biomarkera oksydacyjnych uszkodzeń materiału genetycznego DNA) w skórze, płucach, wątrobie, pęcherzu moczowym oraz w moczu zwierząt. Jako potencjalny mechanizm uszkodzeń autorzy rozważali powstawanie wolnego rodnika dimetyloarsenowego. Badanie to dotyczyło podawania czystego związku modelowym gryzoniom, w związku z czym wynik ten nie stanowi bezpośredniego dowodu wystąpienia takich samych skutków po zjedzeniu owocnika grzyba przez człowieka.
W oparciu o Margines Ekspozycji (MoE) badacze (Bräuer i in. 2018) przeanalizowali scenariusze modelowe dla osoby o masie około 70 kg, szacując orientacyjne roczne spożycie świeżych owocników na poziomie około 90 g/rok przy medianie stężenia DMA (odpowiadającej ok. 12 mg As/kg świeżej masy), 12 g/rok przy stężeniu maksymalnym oraz 10 kg/rok przy stężeniu minimalnym. Są to czysto teoretyczne kalkulacje modelowe ryzyka, a nie normy dietetyczne czy progi bezpieczeństwa. W konkluzji zespół Simone Bräuer zalecił, aby gatunek ten nie był już rekomendowany jako jadalny, odradzając regularne spożywanie w ilości przekraczającej 90 g świeżej masy rocznie ze względu na potencjał rakotwórczy DMA. Z kolei autorzy śródziemnomorskiej rewizji taksonomicznej z 2026 r. (Biketova i in.) sformułowali bardziej kategoryczne stanowisko, zalecając całkowite powstrzymanie się od konsumpcji grzybów z rodzaju Cyanoboletus.
Stanoviště a výskyt
Stanoviště, oblast a roční období
Sinoborowik klinowotrzonowy występuje w Europie i Makaronezji w strefie lasów umiarkowanych, tworząc mikoryzę z drzewami liściastymi (głównie dębami i bukami), a także sporadycznie z drzewami iglastymi (świerk). Spotykany jest w lasach liściastych, mieszanych, a także na obrzeżach dróg leśnych i w starych parkach. Preferuje gleby wilgotne, gliniaste, ilaste lub piaszczysto-gliniaste, o odczynie od słabo kwaśnego do obojętnego lub zasadowego. W opisach z Holandii wskazuje się na gleby wilgotne i umiarkowanie bogate w składniki odżywcze. W Polsce należy do grzybów rzadkich i rozproszonych; współczesne inwentaryzacje mikologiczne odnotowały jego występowanie m.in. w 2020 roku w rezerwacie przyrody „Paraszyńskie Wąwozy” na Pomorzu (w kwaśnej buczynie niżowej). Owocniki wyrastają od lata do jesieni (od maja/czerwca do listopada).
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Andorra | Oblasti nebyly určeny | Neurčeno |
|
| Rakousko | Oblasti nebyly určeny | Neurčeno |
|
| Belgie | Oblasti nebyly určeny | Neurčeno |
|
| Bulharsko | Oblasti nebyly určeny | Neurčeno |
|
| Švýcarsko | Oblasti nebyly určeny | Neurčeno |
|
| Česko | Oblasti nebyly určeny | Neurčeno |
|
| Německo | Oblasti nebyly určeny | Neurčeno |
|
| Dánsko | Oblasti nebyly určeny | Neurčeno |
|
| Španělsko | Oblasti nebyly určeny | Neurčeno |
|
| Francie | Oblasti nebyly určeny | Neurčeno |
|
| Velká Británie | Oblasti nebyly určeny | VII–X |
|
| Řecko | Oblasti nebyly určeny | Neurčeno |
|
| Chorvatsko | Oblasti nebyly určeny | Neurčeno |
|
| Maďarsko | Oblasti nebyly určeny | Neurčeno |
|
| Irsko | Oblasti nebyly určeny | VII–X |
|
| Írán | Oblasti nebyly určeny | Neurčeno |
|
| Itálie | Oblasti nebyly určeny | Neurčeno |
|
| Litva | Oblasti nebyly určeny | Neurčeno |
|
| Lucembursko | Oblasti nebyly určeny | Neurčeno |
|
| Moldavsko | Oblasti nebyly určeny | Neurčeno |
|
| Severní Makedonie | Oblasti nebyly určeny | Neurčeno |
|
| Malta | Oblasti nebyly určeny | Neurčeno |
|
| Nizozemsko | Oblasti nebyly určeny | Neurčeno |
|
| Norsko | Oblasti nebyly určeny | Neurčeno |
|
| Polsko | Bělověžský prales | VI–XI |
|
| Portugalsko | Oblasti nebyly určeny | Neurčeno |
|
| Rumunsko | Oblasti nebyly určeny | Neurčeno |
|
| Srbsko | Oblasti nebyly určeny | Neurčeno |
|
| Rusko | Oblasti nebyly určeny | Neurčeno |
|
| Švédsko | Oblasti nebyly určeny | Neurčeno |
|
| Slovinsko | Oblasti nebyly určeny | Neurčeno |
|
| Slovensko | Oblasti nebyly určeny | Neurčeno |
|
| Turecko | Oblasti nebyly určeny | Neurčeno |
|
| Ukrajina | Oblasti nebyly určeny | Neurčeno |
|
Zdroje
- NDFF Verspreidingsatlas: Cyanoboletus pulverulentus
- cyanoboletus_pulverulentus.deep20261014.collection-documentation
- Weryfikacja polskiego statusu prawnego sinoborowika, 15.10.2026
- Pat O’Reilly, Cyanoboletus pulverulentus — opis terenowy
- Pierwotny zapis źródłowy — P0: cyanoboletus_pulverulentus
- src-assyov-boletales-cyano
- src-biketova-2026
- Rozporządzenie Ministra Środowiska z 9 października 2014 r., Dz.U. 2014 poz. 1408.
- Obwieszczenie Ministra Zdrowia z 13 lutego 2026 r., Dz.U. 2026 poz. 258; jednolity tekst rozporządzenia w sprawie grzybów dopuszczonych do obrotu.
- src-gelardi-2013
- src-munoz-2022-cyano
- src-oolbekkink-1991
- PTMyk — sinoborowik klinowotrzonowy, nazwa aktualna i historyczne
- src-sutara-2005