
Несъедобный
Укажите местоположение, чтобы увидеть данные для своего региона.


Боровик припудренный — это гриб из семейства болетовых, встречающийся в лиственных, хвойных и смешанных лесах, а также в парках. Он образует шляпку от коричневого до оливково-коричневого цвета и желтые поры. Ножка бывает цилиндрической или сужающейся к основанию, вверху желтой, а в нижней части красно-коричневой. Характерной чертой является чрезвычайно быстрое и сильное посинение пор и мякоти при надавливании. В прошлом считался съедобным грибом, в настоящее время не рекомендуется к употреблению, поскольку исследования выявили накопление мышьяка.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
- Консистенция всего плодового тела
- Консистенция всего плодового тела: мясистый.
Шляпка
- Форма шляпки
- у молодых плодовых тел: Форма шляпки: полушаровидный.
у зрелых плодовых тел: Форма шляпки: выпуклый.
у старых плодовых тел: Форма шляпки: плоский.
у зрелых плодовых тел: Форма шляпки: плоский. - Рельеф поверхности шляпки
- у зрелых плодовых тел: Рельеф поверхности шляпки: гладкий.
- Покров шляпки
- у молодых плодовых тел: Покров шляпки: замшевая.
Покров шляпки: шелковистая.
у молодых плодовых тел: Покров шляпки: мучнистый.
у молодых плодовых тел: Покров шляпки: войлочная.
у зрелых плодовых тел: Покров шляпки: голая. - Блеск поверхности шляпки
- у молодых плодовых тел: Блеск поверхности шляпки: матовый.
- Клейкость и слизистость шляпки
- во влажном состоянии: Клейкость и слизистость шляпки: липкий.
Клейкость и слизистость шляпки: липкий. - Характер растрескивания поверхности
- Характер растрескивания поверхности: потрескавшаяся, рисунок трещин не указан.
- Цвет шляпки
- Цвет шляпки: коричневый.
Цвет шляпки: Карминный.
Цвет шляпки: Тёмно-коричневый.
Цвет шляпки: Серо-зелёный.
Цвет шляпки: оливковой.
Цвет шляпки: Оливково-коричневый.
Цвет шляпки: Розовый.
Цвет шляпки: красно-коричневый.
Цвет шляпки: Жёлтый.
Цвет шляпки: жёлто-коричневой.
Цвет шляпки: Желтоватый.
Цвет шляпки: Грязно-тёмно-коричневый. - Положение края
- Положение края: прямой.
у старых плодовых тел: Положение края: отогнутый кверху.
у молодых плодовых тел: Положение края: загнутый внутрь. - Контур края шляпки
- Контур края шляпки: лопастная, волнистый.
- Профиль края шляпки
- Профиль края шляпки: острый.
- Цвет реакции шляпки
- Цвет реакции шляпки: чёрный.
- Диаметр шляпки
- Диаметр шляпки составляет 40–120 mm.
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: трубочки.
Трубочки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: приросший к ножке (трубочки).
- Нисхождение гименофора по ножке
- у зрелых плодовых тел: Нисхождение гименофора по ножке: нисходящий (трубочки).
- Форма пор
- Форма пор: угловатые.
Форма пор: неправильный. - Цвет пор после повреждения
- Цвет пор после повреждения: сине-чёрная.
- Окраска трубочек при повреждении
- Окраска трубочек при повреждении: сине-чёрная.
- Естественный цвет пор
- у зрелых плодовых тел: Естественный цвет пор: желто-оливковый.
Естественный цвет пор: жёлтый.
Естественный цвет пор: оранжевый. - Естественный цвет трубочек
- Естественный цвет трубочек: лимонно-жёлтый.
у зрелых плодовых тел: Естественный цвет трубочек: желто-оливковый.
Ножка и основание
- Форма ножки
- Форма ножки: цилиндрический или сужающийся к основанию.
Форма ножки: веретеновидный. - Основание ножки
- Основание ножки: цилиндрическая.
Основание ножки: сужающийся. - Цвет ножки
- в верхней части ножки: Цвет ножки: ярко-жёлтый.
в нижней части ножки: Цвет ножки: красно-коричневый. - Рельеф поверхности ножки
- в верхней части ножки: Рельеф поверхности ножки: сетчатая.
- Покров поверхности ножки
- в нижней части ножки: Покров поверхности ножки: мучнистый.
- Окраска поверхности ножки при повреждении
- Окраска поверхности ножки при повреждении: сине-чёрная (поверхность ножки).
- Длина ножки
- Длина ножки: 40–100 mm.
- Диаметр ножки
- Диаметр ножки: 5–25 mm.
- Изгиб ножки
- Изгиб ножки: изогнутый.
Мякоть
- Цвет мякоти
- Цвет мякоти: жёлтый.
у старых плодовых тел: Цвет мякоти: красный (мякоть ножки).
Цвет мякоти: беловатая или Желтоватый. - Плотность мякоти
- у молодых плодовых тел: Плотность мякоти: плотный.
- Вкус мякоти
- Вкус мякоти: кислый.
Вкус мякоти: слабый.
Вкус мякоти: сладкий. - Цвет мякоти после повреждения
- Цвет мякоти после повреждения: сине-чёрная (мякоть шляпки).
Цвет мякоти после повреждения: сине-чёрная (мякоть ножки). - Запах мякоти
- Запах мякоти: слабый.
Где и когда растёт
- Местообитание
- Местообитание: лиственный лес или хвойный лес.
Местообитание: лиственный лес, смешанный лес, парк или сад.
Местообитание: лиственный лес. - Субстрат
- Субстрат: почва.
- Характер роста плодовых тел
- Характер роста плодовых тел: одиночно или группами.
- Частота встречаемости
- Период плодоношения
- Плодовые тела появляются с июня по ноябрь.
- Ареал распространения
- Ареал распространения: подтверждено.
Съедобность и кулинария
- Съедобность
- Несъедобный
Законодательство
- Охрана
- В Польше боровик припудренный не подлежит правовой видовой охране.
- Торговля
- Боровик припудренный не числится в польском перечне грибов, разрешённых к обороту и производству пищевой продукции.
С чем можно спутать
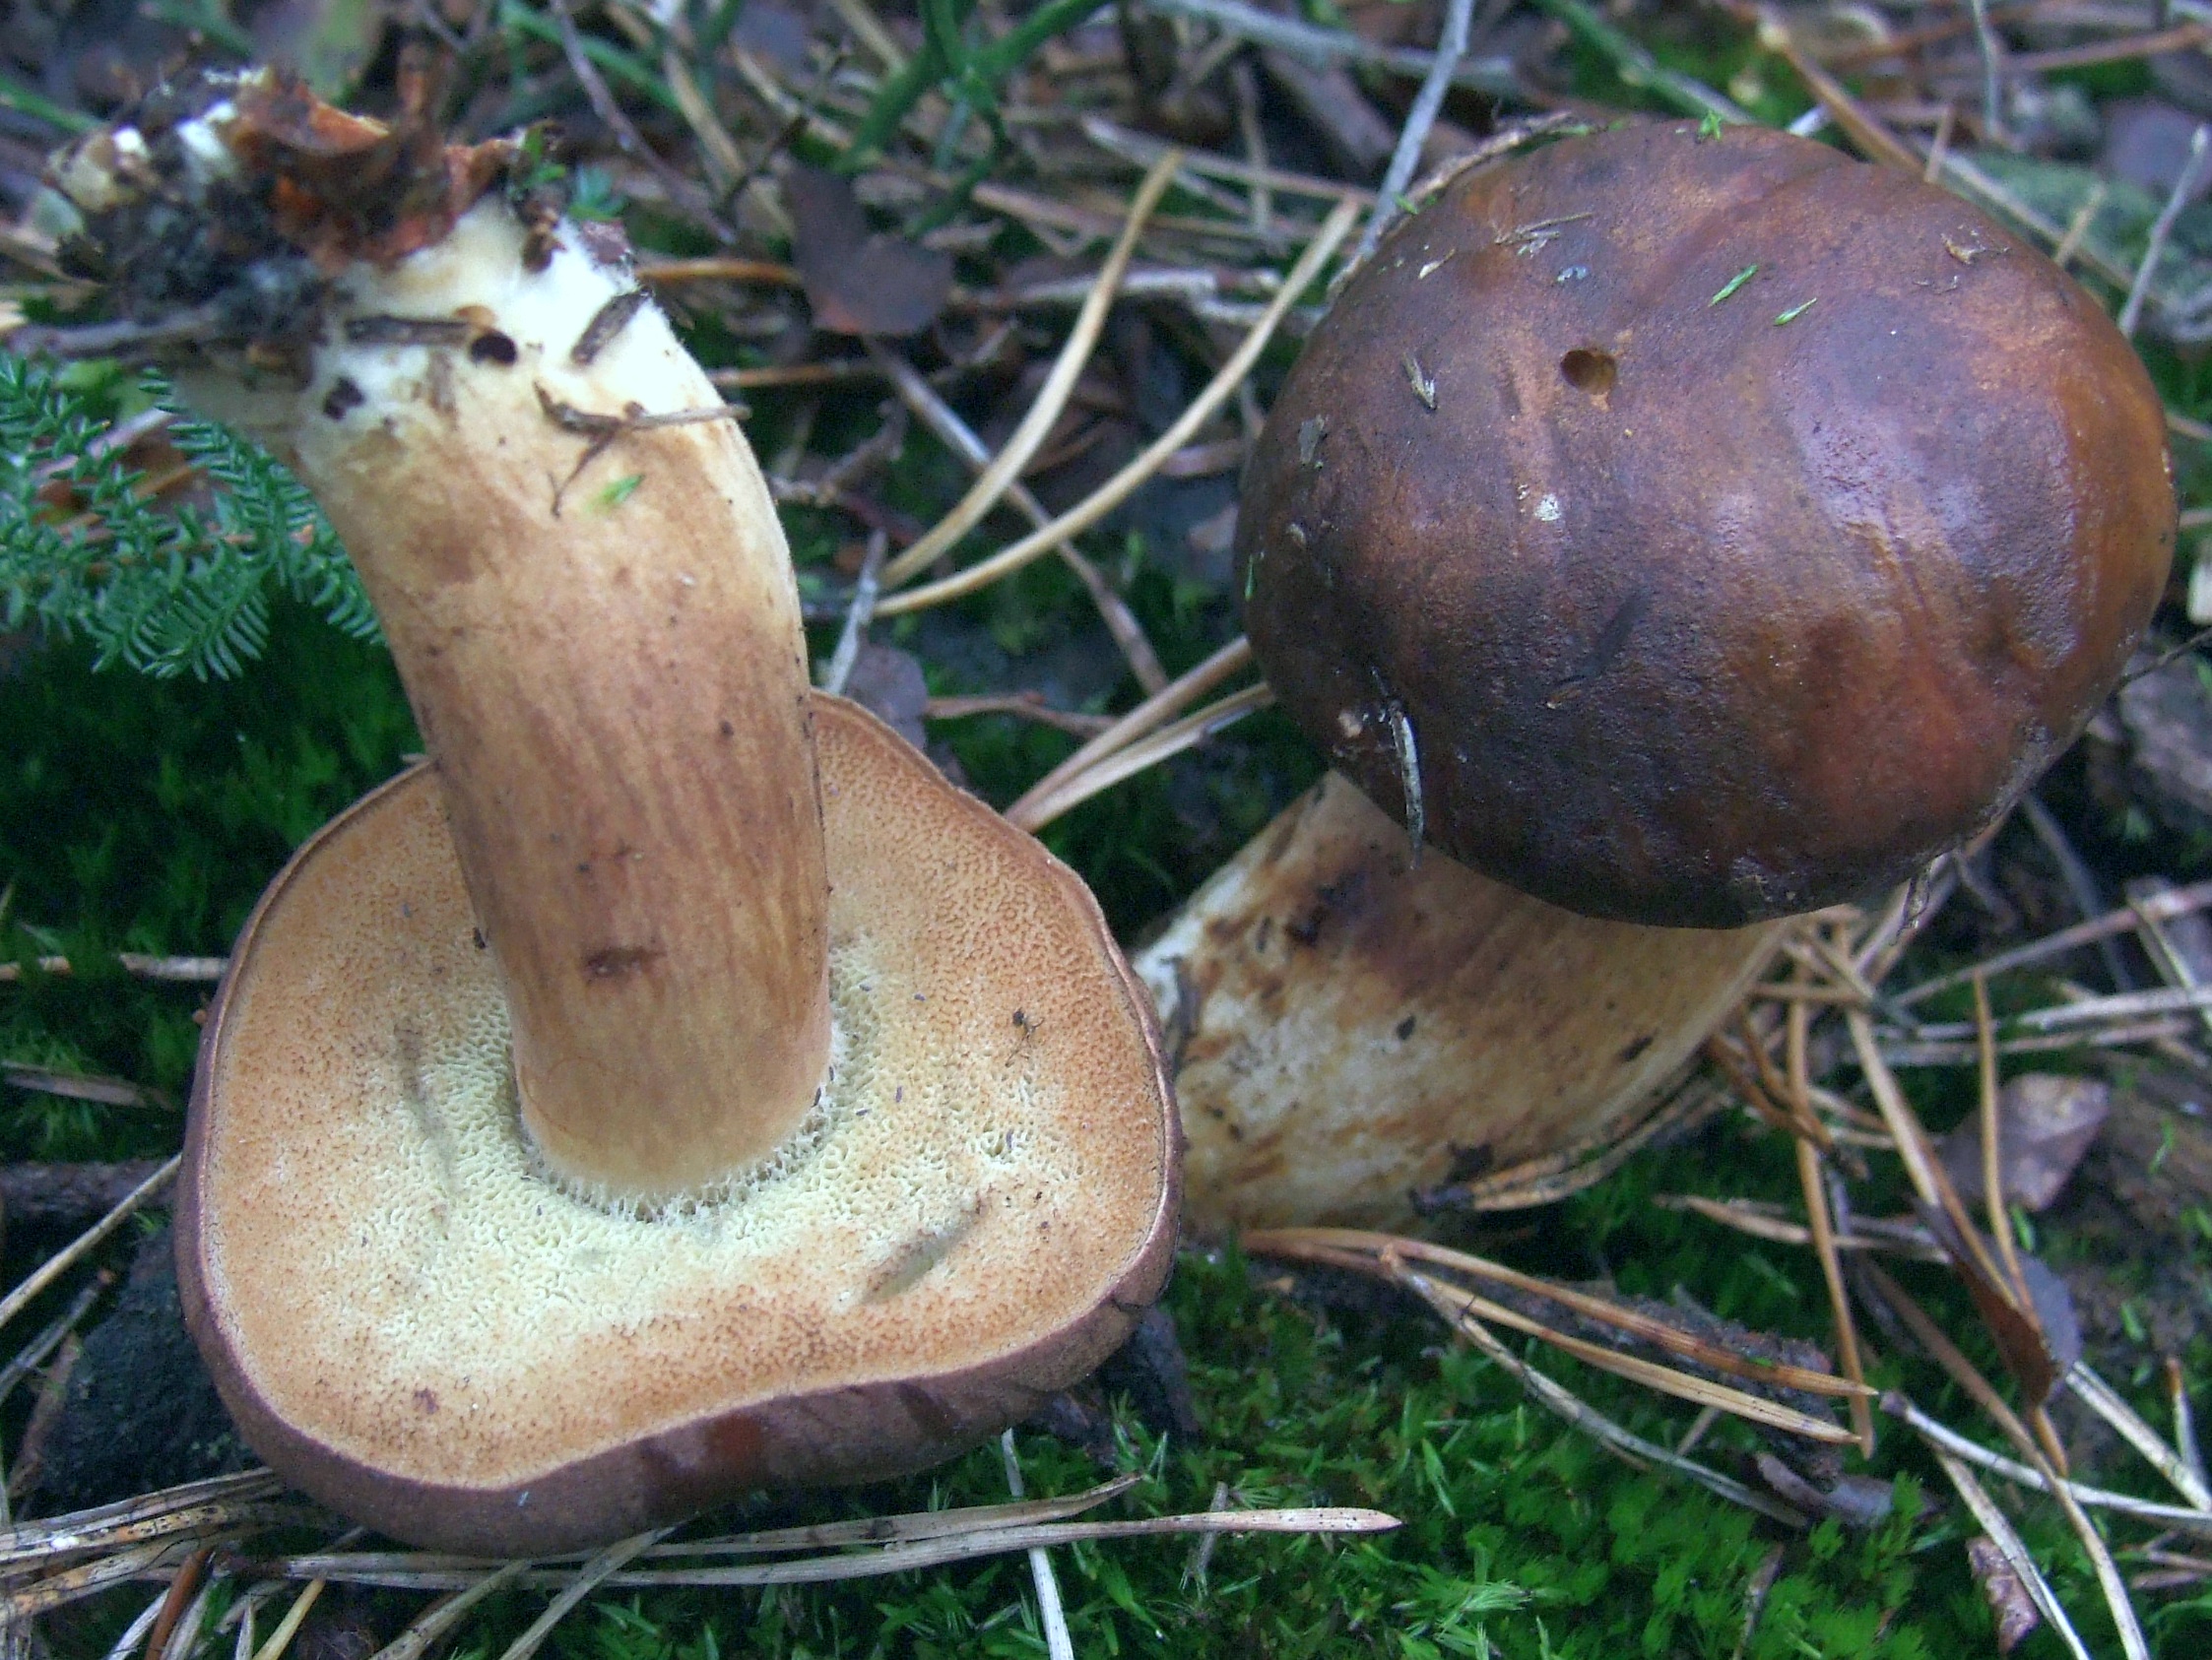
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Источник фото · CC BY-SA 4.0Imleria badia
Основные отличия
Синеборовик клиноножковый (Cyanoboletus pulverulentus) реагирует на прикосновение и повреждение немедленным, бурным и интенсивным изменением окраски всех частей плодового тела до глубокого иссиня-черного цвета. У Imleria badia посинение менее равномерно и сосредоточено прежде всего над трубочками, а также в верхней части ножки.
FAQ
Является ли синеборовик клиноножковый съедобным грибом?
В старых атласах его считали съедобным, но в настоящее время употреблять его в пищу не рекомендуется. Исследования показали способность этого вида к накоплению мышьяка, поэтому авторы публикаций не рекомендуют употреблять его в пищу.
Почему не рекомендуется употреблять этот вид в пищу?
Причиной являются результаты исследований, демонстрирующие высокое накопление мышьяка в плодовых телах. По этой причине микологи и авторы более новых публикаций рекомендуют воздержаться от его сбора в кулинарных целях.
Каковы основные отличительные признаки этого гриба?
Поры и мякоть при надавливании или разрезании очень быстро синеют до темно-синего цвета. Трубочки желтые, а ножка бывает цилиндрической или суженной у основания, желтой вверху и красно-коричневой внизу.
В каких местообитаниях встречается этот вид?
Растет в лиственных, хвойных и смешанных лесах. Его также можно встретить вне леса, например в парках и садах.
В каких месяцах его можно встретить?
В литературе приводимый период появления плодовых тел приходится на промежуток между июнем и ноябрем. Различные источники указывают более узкие диапазоны в зависимости от местных погодных условий.
Чем он отличается от польского гриба?
Синоборовик синеет значительно быстрее и сильнее, принимая темный оттенок. У него также желтые поры и ножка вверху желтая, а книзу красно-коричневая, с возможной тонкой структурой на вершине.
Как звучит прежнее польское название этого вида?
Ранее в польской литературе этот вид фигурировал под названием borowik klinowotrzonowy. Актуальное название sinoborowik klinowotrzonowy рекомендует Польское микологическое общество (PTMyk).
Любитель
Нижняя сторона шляпки
- Длина трубочек
- Длина трубочек: до 15 mm.
Названия и история
- Действующее национальное название
- sinoborowik klinowotrzonowy
- Действующее таксономическое название
- Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Прежние национальные названия
- borowik klinowotrzonowy, borowik wrażliwy, borowik siniejący, borowik czerniejący, borowik omglony, podgrzybek omglony
Наблюдения дома
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 ч снимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: коричневый.
- Оттенок спорового отпечатка
- Оттенок спорового отпечатка: Оливково-коричневый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: почти веретеновидный. Форма споры: широкоэллипсоидный.
- Поверхность споры
- Поверхность споры: гладкий.
- Размеры споры
- Длина 10–15,5 µm, ширина 4–6 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Реакция почвы
- Реакция почвы: кислый.
Реакция почвы: нейтральная. - Лиственные деревья поблизости
- Лиственные деревья поблизости: Castanea sativa, Carpinus betulus, Fagus sylvatica, Quercus cerris, Quercus ilex, Quercus pubescens, Quercus robur или Tilia cordata.
Лиственные деревья поблизости: бук, липа, каштан посевной или дуб.
Лиственные деревья поблизости: Quercus coccifera, Quercus pyrenaica, Quercus suber, ольха, берёза или Ostrya. - Хвойные деревья поблизости
- Хвойные деревья поблизости: Pinus nigra, Pinus pinea, Pinus sylvestris, Cedrus libani или тсуга.
Хвойные деревья поблизости: пихта или Picea abies. - Кустарники поблизости
- Кустарники поблизости: Corylus avellana.
- Микоризные партнёры
- Общая связь вида: Микоризные партнёры: Castanea (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Carpinus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Corylus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Fagus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Quercus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Tilia (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Pinus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Cedrus (общий перечень партнёров).
Общая связь вида: Микоризные партнёры: Tsuga (общий перечень партнёров). - Способ питания
- Способ питания: эктомикоризный.
История и культура
Таксономическая история синеющего дубовика тесно связана с истоками современной микологии и содержит важный польский исторический акцент. Этот вид был впервые научно описан в 1836 году под названием Boletus pulverulentus врачом и микологом Вильгельмом Опатовским. Описание вышло в его признанной диссертации, посвященной болетовым грибам (Commentatio historico-naturalis de familia Fungorum Boletoideorum), опубликованной в Берлине. Видовой эпитет pulverulentus (лат. припудренный, подернутый дымкой) относился к нежной, словно слегка припудренной поверхности молодых плодовых тел, что также нашло отражение в польском обиходном названии.
На протяжении почти двух столетий таксон фигурировал в литературе в широко понимаемом роде Boletus. Перелом в его классификации произошел в 2014 году, когда итальянские исследователи Маттео Джеларди (Matteo Gelardi), Альфредо Виццини (Alfredo Vizzini) и Джампаоло Симонини (Giampaolo Simonini) провели филогенетическую ревизию болетовых и создали новый род Cyanoboletus, в который перенесли вид Опатовского. Название нового рода было вдохновлено эффектной темно-синей цветовой реакцией окисляющейся мякоти. Эти изменения отражают эволюцию систематических знаний в европейской микологической литературе.
Съедобность и безопасность
Боровик припудренный (Cyanoboletus pulverulentus) — условно-съедобный гриб, требующий большой осторожности со стороны потребителя. В сыром виде он токсичен и вызывает сильное раздражение пищеварительного тракта, проявляющееся болями в животе, тошнотой и рвотой. Особую опасность для здоровья, связанную с этим видом, представляет его уникальная способность к гипераккумуляции мышьяка из почвы, включая соединения диметиларсиновой кислоты.
Обязательным условием для употребления является основательная термическая обработка — отваривание в течение не менее 15–20 минут со сливом отвара или тщательное обжаривание. Несмотря на приготовление, не рекомендуется употреблять его большими порциями или регулярно; его следует рассматривать исключительно как гриб для редкого употребления.
Мякоть сырого гриба обладает приятным, мягким, слегка ореховым вкусом и нежным ароматом. При надавливании и разрезании немедленно интенсивно синеет, а затем темнеет, что после варки придает блюду почти черный цвет.
Отношение к употреблению различается в зависимости от региона. В Польше, Чехии и Словакии его охотно собирают опытные грибники как вкусный домашний гриб, тогда как в Западной Европе (в том числе в Германии) из-за опасений относительно содержания мышьяка санитарные ведомства рекомендуют воздерживаться и советуют избегать его сбора.
Местообитание и встречаемость
Синеющий дубовик (Cyanoboletus pulverulentus) встречается в Европе, где заселяет разнообразные лиственные и смешанные леса. В польской микобиоте он признан редким таксоном и внесен в национальный красный список 2006 года со статусом R (редкий — потенциально находящийся под угрозой). Современные систематические и филогенетические исследования четко разграничивают североамериканские находки и европейский вид, подтвержденный ареал которого охватывает страны Европы.
Этот вид образует эктомикоризу преимущественно с лиственными деревьями. Чаще всего он сопутствует дубам (Quercus), букам (Fagus sylvatica), грабам (Carpinus betulus) и липам (Tilia). Изредка отмечается под хвойными деревьями, такими как ели или сосны. Вне лесов встречается в городских парках, садах и придорожных аллеях, а на юге Европы произрастает в том числе в теплолюбивых дубравах и древостоях с каштаном посевным (Castanea sativa).
Предпочитает плодородные, глинистые или суглинистые почвы. Плодовые тела охотнее всего вырастают на обнаженной влажной земле — в придорожных канавах, на откосах лесных тропинок и в местах с тонким слоем подстилки. В Польше задокументированный в сводках диапазон встречаемости плодовых тел охватывает месяцы с июня по ноябрь (VI–XI), что определяет временные рамки зафиксированных наблюдений, а не эмпирическое распределение численности.
Исследователь
Съедобность и кулинария
Данные источников: съедобность, употребление и использование
- Съедобность
- Несъедобный — источник определения
Źródło bez opisu bibliograficznego · img.icon[src="/mykoatlas/noedible.png"]@title: Nejedlá houba
Научные названия и таксономия
- Действующее научное название
Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Прежние научные названия
- Boletus pulverulentus Opat.[31]
Gatunek został po raz pierwszy opisany naukowo w 1836 roku przez polskiego lekarza i mykologa Wilhelma Bogusława Opatowskiego pod nazwą Boletus pulverulentus. Przez dziesięciolecia klasyfikowano go w rodzaju Boletus lub zaliczano do podrodzaju Xerocomus. W 2014 roku włoscy mykolodzy Matteo Gelardi, Alfredo Vizzini i Giampaolo Simonini, w oparciu o analizy filogenetyczne sekwencji DNA, wykazali jego ewolucyjną odrębność i utworzyli nowy rodzaj Cyanoboletus (z greckiego kyanos – ciemnoniebieski, modry), wyznaczając sinoborowika klinowotrzonowego jako gatunek typowy. Łaciński epitet pulverulentus pochodzi od słowa pulvis (pył, proch) i oznacza „oprószony” lub „omglony”, co odnosi się do matowej, delikatnie aksamitnej powłoki młodych kapeluszy.
- Zakres ujęcia taksonomicznego
Cyanoboletus pulverulentus wskazany jako aktualna nazwa na stronie PTMyk; źródłowe przypisanie nazw do rekordu, bez rozstrzygnięcia zgodności zakresów dawnych nazw.
[31]
Экология и распространение
- Частота встречаемости
- Нидерланды: Частота встречаемости: нечастый. [1]
Лабораторная диагностика
Структурированные данные
Базидии
- Число спор на базидии
- Число спор на базидии составляет 4. [27]
- Пряжки
- Пряжки: отсутствует. [29]
Гимениальные цистиды
- Форма гимениальной цистиды
- Форма гимениальной цистиды: веретеновидная до бутылковидной. [23]
- Наличие гимениальных глеоцистид
- Наличие гимениальных глеоцистид: присутствует. [23]
Наличие гимениальных глеоцистид: присутствует. [23] - Обилие гимениальных глеоцистид
- Обилие гимениальных глеоцистид: немногочисленные. [23]
Кожица шляпки
- Инкрустация гиф кожицы
- Инкрустация гиф кожицы: присутствует. [29]
- Окраска пигмента кожицы
- Окраска пигмента кожицы: коричневый. [29]
- Строение кожицы шляпки
- Строение кожицы шляпки: триходерм. [29]
Строение кожицы шляпки: палисадодерма. [22] - Форма верхушки концевых клеток пилеипеллиса
- Форма верхушки концевых клеток пилеипеллиса: закруглённый. [29]
- Длина концевых клеток пилеипеллиса
- Длина концевых клеток пилеипеллиса: 45–80 µm. [29]
- Форма концевых клеток пилеипеллиса
- Форма концевых клеток пилеипеллиса: цилиндрический. [29]
- Ширина концевых клеток пилеипеллиса
- Ширина концевых клеток пилеипеллиса: 3–6,5 µm. [29]
Химические реакции
- Амилоидная реакция
- Амилоидная реакция: отрицательный. [23]
Последовательности ДНК
- Последовательность
Cyanoboletus pulverulentus; ITS; LT714707; PRM 944013
Споры
- Положение апикулюса базидиоспоры
- Положение апикулюса базидиоспоры: боковой (сильно). [23]
- Форма верхушки споры
- Форма верхушки споры: острый. [23]
- Цвет спор под микроскопом
- Цвет спор под микроскопом: бледно-жёлтый. [29]
- Отношение длины споры к ширине
- Отношение длины споры к ширине: 2,6–3. [29]
- Форма споры
- Форма споры: узкоминдалевидный. [23]
Форма споры: почти веретеновидный. [17]
Форма споры: широкоэллипсоидный. [17] - Надапикулярная депрессия базидиоспоры
- Надапикулярная депрессия базидиоспоры: выраженное. [23]
- Поверхность споры
- Поверхность споры: гладкий. [17]
- Толщина оболочки споры
- Толщина оболочки споры: толстостенный. [29]
Трама гименофора
- Тип трамы гименофора
- Тип трамы гименофора: билатеральная (подтип Boletus). [32]
Материал и методы исследований
- Результаты, приведённые в источниках — Длина споры
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 12,5–14,5 µm (skrajnie do 15,5 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 10–14 µm [30] - Результаты, приведённые в источниках — Ширина споры
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 4,2–5,2 µm (skrajnie do 5,4 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 4–6 µm [30]
Metody i zapisy źródłowe — European B. pulverulentus in a comparative paragraph; published European literature and author observations, without a named result-bearing voucher.
Liczba zarodników na jednej podstawce — zapis źródłowy: „European B. pulverulentus: the shorter and wider 4-spored basidia” [27]
Metody i zapisy źródłowe — C. pulverulentus PO-F2601, author-labelled SEM panels 4c–f.; C. pulverulentus PO-F2601, author-labelled KOH panel 4h.; Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.; Conditional author identification-key branch 3 for C. pulverulentus.
Numer okazu: PO-F2601.
Materiał źródłowy: C. pulverulentus PO-F2601, author-labelled KOH panel 4h.
Numer okazu: PO-F2601.
Materiał źródłowy: Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.
Materiał źródłowy: Conditional author identification-key branch 3 for C. pulverulentus.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Author-labelled SEM panels; section 2.2 lists instruments collectively, without assigning one to each panel.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Opis metody w źródle: Figure 4h; concentration/objective for this panel unreported.
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Cyanoboletus pulverulentus is macroscopically characterised by small to medium-sized basidiomes, growing solitary or in groups. The pileus is rather variable in colouration: yellow, buff brown, olivaceus brown to raspberry red, with a silky to slightly viscous surface and an acute pileus margin; the stipe is yellow, sometimes with brown or reddish colours in the lower part, rarely with a reticulum in the upper part [2]; tubes are lemon yellow; the context is yellow, sometimes reddish in the stipe of aged basidiomes, which turns intense blue with a turquoise tint (Figure 3). Microscopically, this species is characterised by narrow-amygdaliform, subfusiform-subamygdaliform, or amygdaliform basidiospores, often with a strongly lateralised apiculus (hilar appendix) and pronounced suprahilar depression, (10.91) 12.29 ± 0.9 (13.46) × (4.53) 4.87 ± 0.32 (5.39) µm, with the largest Q value of the European species of Cyanoboletus—(2.41) 2.53 ± 0.18 (2.73) (Figure 4c,d, Figure 5 and Figure 6). Thriving in acidic to neutral soils across temperate European and Macaronesian forests, mycorrhizal with broadleaves and conifers. It also differs from other European Cyanoboletus species and C. cyaneitinctus by arsenic hyperaccumulation ([40] and this study).” [23]
Kształt cystydy hymenialnej; Kształt szczytu zarodnika; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Obfitość gleocystyd hymenialnych; Obecność gleocystyd hymenialnych — zapis źródłowy: „3. Basidiospores often narrowly amygdaliform, with pronounced lateralised apiculus, pronounced suprahilar depression, and with relatively acute apex; gloeocystidia sparse………………………………………………………………………………………………………………………………………………………………………………………………………..C. pulverulentus” [23]
Obecność gleocystyd hymenialnych — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Metody i zapisy źródłowe — Explicit species-level anatomical attribution, not a result assigned to one voucher.
Typ tramy hymenoforu — zapis źródłowy: „The true boletoid trama … Boletus pulverulentus” [32]
Metody i zapisy źródłowe — Author species account and illustrated BAR2000072503; two listed collections are retained separately.
Pochodzenie materiału: Northern Spain: Cantabria and Navarra; exact two collection records retained separately..
Inkrustacja strzępek skórki — zapis źródłowy: „finamente incrustadas” [29]
Barwa pigmentu skórki — zapis źródłowy: „pigmento intracelular marrón” [29]
Organizacja skórki kapelusza — zapis źródłowy: „tricoderma” [29]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „elementos terminales … cilindráceos, con al ápice redondeado, de calibre 45–80 × 3–5.5 (6.5) µm” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „amarillo pálidas” [29]
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „12.5–14.5(15.5) × 4.2–5.2(5.4) µm; Q=2.6–2.9(3)” [29]
Grubość ściany zarodnika — zapis źródłowy: „paredes espesas” [29]
Metody i zapisy źródłowe — Boris Assyov authorial species account; no voucher-specific microscopic result supplied.
Organizacja skórki kapelusza — zapis źródłowy: „Pileipellis a palisadoderm of cylindrical, finely incrusted cells.” [22]
Metody i zapisy źródłowe — Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection.
Pochodzenie materiału: Netherlands, Valburg/Oosterhout and Bunde/Bunderbos..
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Spores (n=20) 10.0–14.0 × 4.0–6.0 µm” [30]
Metody i zapisy źródłowe — First Nature focal species spore description.
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Spores: Subfusiform to broadly ellipsoidal, smooth.” [17]
Верификация произрастания — охват и ограничения
Materiał: Polska kolekcja autora pod źródłową nazwą Boletus pulverulentus; nie przeniesiono danych azjatyckich segregatów.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[19]Общие ограничения интерпретации источника
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Объём обработки
Перед завершением запись требует дополнения или проверки.
- Поиск регионов произрастания требует уточнения.
- Взаимосвязи прежних данных требуют повторной проверки.
- Новые источники требуют учёта сведений, обнаруженных в ходе обзора.
Правовая основа и объём оценки
Важнейшие вещества и их действие
Cyanoboletus pulverulentus wyróżnia się wśród wszystkich europejskich grzybów rurkowych wyjątkową zdolnością gromadzenia arsenu w owocnikach, co stało się przedmiotem szczegółowych badań chemicznych i toksykologicznych:
Hiperakumulacja arsenu i formy chemiczne (spesjacja): W badaniu analitycznym z 2018 roku (Bräuer i in., opublikowanym w czasopiśmie Food Chemistry) oznaczono całkowitą zawartość arsenu w 39 kolekcjach początkowo rozpoznanych jako C. pulverulentus (36 kolekcji z Czech oraz po jednej z Francji, Portugalii i USA). Całkowite stężenie arsenu wynosiło średnio 250 mg/kg suchej masy (odchylenie standardowe SD = 260 mg/kg), z medianą 160 mg/kg i zakresem od 2,4 do 1300 mg/kg suchej masy. Jedną kolekcję z USA autorzy zaliczyli później do innego, prawdopodobnie jeszcze nieopisanego gatunku z rodzaju Cyanoboletus; podane statystyki dotyczą pierwotnej grupy 39 kolekcji i nie były przeliczane osobno dla pozostałych 38.
Skład chemiczny związków arsenu i rozkład w owocniku: W wyciągach wodnych z badanych owocników kwas dimetyloarsenowy (DMA – dimethylarsinic acid) wykryto we wszystkich 39 kolekcjach (100%), gdzie stanowił on od 79% do 110% (i ponad 99% wykrytych frakcji rozpuszczalnych) wyekstrahowanego arsenu. Zastosowana analiza spesjacyjna poszczególnych form chemicznych dała sumaryczny wynik odpowiadający 43–110% oznaczenia arsenu całkowitego (średnio 71 ± 9%). Odsetek ten stanowi analityczne porównanie dwóch niezależnych procedur pomiarowych, a nie bezpośredni udział DMA w całym arsenie czy wyznaczoną dawkę dla konsumenta. W 8 z 39 przebadanych kolekcji stwierdzono ponadto śladowe ilości kwasu monometylarsenowego (MA, 0,04–0,19% wyekstrahowanego As). Zastosowana metoda analityczna nie wykryła obecności nieorganicznego arsenu (arsenianów ani arseninów), co oznacza poziom poniżej granicy wykrywalności aparatury, lecz nie dowodzi jego absolutnego braku. Skuteczność ekstrakcji laboratoryjnej była niepełna. W tym samym badaniu (Bräuer i in. 2018) analizowano również szczegółowy rozkład arsenu w poszczególnych częściach owocnika na przykładzie dwóch okazów (Fig. 3); wykazano, że większość zakumulowanego arsenu koncentrowała się w hymenium (warstwie rurek z zarodnikami). Wynik ten oparto na pomiarze dwóch owocników i nie stanowi on podstawy do wyznaczania procedur obróbki kulinarnej.
Wyniki badań toksykologicznych DMA i ocena ryzyka: Kwas dimetyloarsenowy jest organicznym związkiem arsenu, sklasyfikowanym przez Międzynarodową Agencję Badań nad Rakiem (IARC) w Grupie 2B jako substancja przypuszczalnie rakotwórcza dla ludzi. Klasyfikacja ta dotyczy czystego związku chemicznego, a nie całego grzyba czy pojedynczego posiłku. W osobnym badaniu laboratoryjnym (Yamanaka i in. 2001) podawanie samego związku DMA myszom drogą pokarmową doprowadziło do podwyższenia poziomu 8-oxo-dG (8-okso-2'-deoksyguanozyny – uznanego biomarkera oksydacyjnych uszkodzeń materiału genetycznego DNA) w skórze, płucach, wątrobie, pęcherzu moczowym oraz w moczu zwierząt. Jako potencjalny mechanizm uszkodzeń autorzy rozważali powstawanie wolnego rodnika dimetyloarsenowego. Badanie to dotyczyło podawania czystego związku modelowym gryzoniom, w związku z czym wynik ten nie stanowi bezpośredniego dowodu wystąpienia takich samych skutków po zjedzeniu owocnika grzyba przez człowieka.
W oparciu o Margines Ekspozycji (MoE) badacze (Bräuer i in. 2018) przeanalizowali scenariusze modelowe dla osoby o masie około 70 kg, szacując orientacyjne roczne spożycie świeżych owocników na poziomie około 90 g/rok przy medianie stężenia DMA (odpowiadającej ok. 12 mg As/kg świeżej masy), 12 g/rok przy stężeniu maksymalnym oraz 10 kg/rok przy stężeniu minimalnym. Są to czysto teoretyczne kalkulacje modelowe ryzyka, a nie normy dietetyczne czy progi bezpieczeństwa. W konkluzji zespół Simone Bräuer zalecił, aby gatunek ten nie był już rekomendowany jako jadalny, odradzając regularne spożywanie w ilości przekraczającej 90 g świeżej masy rocznie ze względu na potencjał rakotwórczy DMA. Z kolei autorzy śródziemnomorskiej rewizji taksonomicznej z 2026 r. (Biketova i in.) sformułowali bardziej kategoryczne stanowisko, zalecając całkowite powstrzymanie się od konsumpcji grzybów z rodzaju Cyanoboletus.
Местообитание и встречаемость
Местообитание, регион и сезон
Sinoborowik klinowotrzonowy występuje w Europie i Makaronezji w strefie lasów umiarkowanych, tworząc mikoryzę z drzewami liściastymi (głównie dębami i bukami), a także sporadycznie z drzewami iglastymi (świerk). Spotykany jest w lasach liściastych, mieszanych, a także na obrzeżach dróg leśnych i w starych parkach. Preferuje gleby wilgotne, gliniaste, ilaste lub piaszczysto-gliniaste, o odczynie od słabo kwaśnego do obojętnego lub zasadowego. W opisach z Holandii wskazuje się na gleby wilgotne i umiarkowanie bogate w składniki odżywcze. W Polsce należy do grzybów rzadkich i rozproszonych; współczesne inwentaryzacje mikologiczne odnotowały jego występowanie m.in. w 2020 roku w rezerwacie przyrody „Paraszyńskie Wąwozy” na Pomorzu (w kwaśnej buczynie niżowej). Owocniki wyrastają od lata do jesieni (od maja/czerwca do listopada).
Подтверждённый ареал распространения
Все области подтверждены в сохранённых исходных данных.
| Страна | Регионы и местонахождения | Плодоношение | Источники |
|---|---|---|---|
| Андорра | В сохранённых данных регионы не установлены | Не установлено |
|
| Австрия | В сохранённых данных регионы не установлены | Не установлено |
|
| Бельгия | В сохранённых данных регионы не установлены | Не установлено |
|
| Болгария | В сохранённых данных регионы не установлены | Не установлено |
|
| Швейцария | В сохранённых данных регионы не установлены | Не установлено |
|
| Чехия | В сохранённых данных регионы не установлены | Не установлено |
|
| Германия | В сохранённых данных регионы не установлены | Не установлено |
|
| Дания | В сохранённых данных регионы не установлены | Не установлено |
|
| Испания | В сохранённых данных регионы не установлены | Не установлено |
|
| Франция | В сохранённых данных регионы не установлены | Не установлено |
|
| Великобритания | В сохранённых данных регионы не установлены | VII–X |
|
| Греция | В сохранённых данных регионы не установлены | Не установлено |
|
| Хорватия | В сохранённых данных регионы не установлены | Не установлено |
|
| Венгрия | В сохранённых данных регионы не установлены | Не установлено |
|
| Ирландия | В сохранённых данных регионы не установлены | VII–X |
|
| Иран | В сохранённых данных регионы не установлены | Не установлено |
|
| Италия | В сохранённых данных регионы не установлены | Не установлено |
|
| Литва | В сохранённых данных регионы не установлены | Не установлено |
|
| Люксембург | В сохранённых данных регионы не установлены | Не установлено |
|
| Молдова | В сохранённых данных регионы не установлены | Не установлено |
|
| Северная Македония | В сохранённых данных регионы не установлены | Не установлено |
|
| Мальта | В сохранённых данных регионы не установлены | Не установлено |
|
| Нидерланды | В сохранённых данных регионы не установлены | Не установлено |
|
| Норвегия | В сохранённых данных регионы не установлены | Не установлено |
|
| Польша | Беловежская пуща | VI–XI |
|
| Португалия | В сохранённых данных регионы не установлены | Не установлено |
|
| Румыния | В сохранённых данных регионы не установлены | Не установлено |
|
| Сербия | В сохранённых данных регионы не установлены | Не установлено |
|
| Россия | В сохранённых данных регионы не установлены | Не установлено |
|
| Швеция | В сохранённых данных регионы не установлены | Не установлено |
|
| Словения | В сохранённых данных регионы не установлены | Не установлено |
|
| Словакия | В сохранённых данных регионы не установлены | Не установлено |
|
| Турция | В сохранённых данных регионы не установлены | Не установлено |
|
| Украина | В сохранённых данных регионы не установлены | Не установлено |
|
Источники
- NDFF Verspreidingsatlas: Cyanoboletus pulverulentus
- cyanoboletus_pulverulentus.deep20261014.collection-documentation
- Weryfikacja polskiego statusu prawnego sinoborowika, 15.10.2026
- Pat O’Reilly, Cyanoboletus pulverulentus — opis terenowy
- Pierwotny zapis źródłowy — P0: cyanoboletus_pulverulentus
- src-assyov-boletales-cyano
- src-biketova-2026
- Rozporządzenie Ministra Środowiska z 9 października 2014 r., Dz.U. 2014 poz. 1408.
- Obwieszczenie Ministra Zdrowia z 13 lutego 2026 r., Dz.U. 2026 poz. 258; jednolity tekst rozporządzenia w sprawie grzybów dopuszczonych do obrotu.
- src-gelardi-2013
- src-munoz-2022-cyano
- src-oolbekkink-1991
- PTMyk — sinoborowik klinowotrzonowy, nazwa aktualna i historyczne
- src-sutara-2005