
Неядомы
Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


Сінябаравік клінаножкавы — гэта грыб з сямейства баравіковых, які сустракаецца ў лісцевых, іглічных і мяшаных лясах, а таксама ў парках. Утварае шапку карычневага да аліўкава-карычневага колеру і жоўтыя поры. Ножка бывае цыліндрычнай або звужанай да асновы, наверсе жоўтая, а ў ніжняй частцы чырвона-карычневая. Характэрнай рысай з'яўляецца надзвычай хуткае і моцнае сіненне пор і мякаці пасля націскання. Раней лічыўся ядомым грыбам, цяпер не рэкамендуецца, паколькі даследаванні паказалі акумуляцыю мыш'яку.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
- Кансістэнцыя ўсяго пладовага цела
- Кансістэнцыя ўсяго пладовага цела: мясісты.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у старых пладовых цел: Форма капялюшыка: плоскі.
у спелых пладовых цел: Форма капялюшыка: плоскі. - Рэльеф паверхні капялюшыка
- у спелых пладовых цел: Рэльеф паверхні капялюшыка: гладкі.
- Покрыва капялюшыка
- у маладых пладовых цел: Покрыва капялюшыка: замшавая.
Покрыва капялюшыка: шаўкавістая.
у маладых пладовых цел: Покрыва капялюшыка: мучністы.
у маладых пладовых цел: Покрыва капялюшыка: лямцаватая.
у спелых пладовых цел: Покрыва капялюшыка: голая. - Бляск паверхні капялюшыка
- у маладых пладовых цел: Бляск паверхні капялюшыка: матавы.
- Ліпкасць і слізістасць капялюшыка
- у мокрым стане: Ліпкасць і слізістасць капялюшыка: ліпкі.
Ліпкасць і слізістасць капялюшыка: ліпкі. - Узор расколін паверхні
- Узор расколін паверхні: патрэсканая, характар расколін не пазначаны.
- Колер капялюшыка
- Колер капялюшыка: карычневы.
Колер капялюшыка: кармінавы.
Колер капялюшыка: цёмна-карычневы.
Колер капялюшыка: шэра-зялёны.
Колер капялюшыка: аліўкавай.
Колер капялюшыка: аліўкава-карычневы.
Колер капялюшыка: ружовы.
Колер капялюшыка: чырвона-карычневы.
Колер капялюшыка: жоўты.
Колер капялюшыка: жоўта-карычневай.
Колер капялюшыка: жаўтаваты.
Колер капялюшыка: брудны цёмна-карычневы. - Размяшчэнне краю
- Размяшчэнне краю: прамы.
у старых пладовых цел: Размяшчэнне краю: адагнуты ўгару.
у маладых пладовых цел: Размяшчэнне краю: загнуты ўсярэдзіну. - Абрыс краю капялюшыка
- Абрыс краю капялюшыка: лопасцепадобны, хвалісты.
- Профіль краю капялюшыка
- Профіль краю капялюшыка: востры.
- Колер рэакцыі капялюшыка
- Колер рэакцыі капялюшыка: чорны.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 40–120 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
Трубачкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (трубачкі).
- Нызыходжанне гіменафора па ножцы
- у спелых пладовых цел: Нызыходжанне гіменафора па ножцы: сыходны (трубачкі).
- Форма пор
- Форма пор: вуглаватыя.
Форма пор: няправільны. - Колер пор пасля пашкоджання
- Колер пор пасля пашкоджання: сіня-чорная.
- Колер трубачак пасля пашкоджання
- Колер трубачак пасля пашкоджання: сіня-чорная.
- Натуральны колер пор
- у спелых пладовых цел: Натуральны колер пор: жоўта-аліўкавы.
Натуральны колер пор: жоўты.
Натуральны колер пор: аранжавы. - Натуральны колер трубачак
- Натуральны колер трубачак: лімонна-жоўты.
у спелых пладовых цел: Натуральны колер трубачак: жоўта-аліўкавы.
Ножка і аснова
- Форма ножкі
- Форма ножкі: цыліндрычны або звужаецца да асновы.
Форма ножкі: верацёнападобны. - Аснова ножкі
- Аснова ножкі: цыліндрычная.
Аснова ножкі: звужаецца. - Колер ножкі
- у верхняй частцы ножкі: Колер ножкі: ярка-жоўты.
у ніжняй частцы ножкі: Колер ножкі: чырвона-карычневы. - Рэльеф паверхні ножкі
- у верхняй частцы ножкі: Рэльеф паверхні ножкі: сеткаватае.
- Покрыва паверхні ножкі
- у ніжняй частцы ножкі: Покрыва паверхні ножкі: мучністы.
- Афарбоўка паверхні ножкі пасля пашкоджання
- Афарбоўка паверхні ножкі пасля пашкоджання: сіня-чорная (паверхня ножкі).
- Даўжыня ножкі
- Даўжыня ножкі: 40–100 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 5–25 mm.
- Выгіб ножкі
- Выгіб ножкі: выгнуты.
Мякаць
- Колер мякаці
- Колер мякаці: жоўты.
у старых пладовых цел: Колер мякаці: чырвоны (мякаць ножкі).
Колер мякаці: белаватая або жаўтаваты. - Шчыльнасць мякаці
- у маладых пладовых цел: Шчыльнасць мякаці: шчыльны.
- Смак мякаці
- Смак мякаці: кіслы.
Смак мякаці: слабы.
Смак мякаці: салодкі. - Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: сіня-чорная (мякаць капялюшыка).
Колер мякаці пасля пашкоджання: сіня-чорная (мякаць ножкі). - Пах мякаці
- Пах мякаці: слабы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лісцевы лес або хвойны лес.
Месцапражыванне: лісцевы лес, змешаны лес, парк або сад.
Месцапражыванне: лісцевы лес. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку або групамі.
- Частата знаходак
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да лістапада.
- Арэал распаўсюджання
- Арэал распаўсюджання: пацверджана.
Ядомасць і кулінарыя
- Ядомасць
- Неядомы
Права
- Ахова
- У Польшчы баравік прыпудраны не падлягае прававой ахове віду.
- Гандаль
- Баравік прыпудраны не фігуруе ў польскім пераліку грыбоў, дазволеных да абароту і вытворчасці перапрацаванай прадукцыі.
З чым можна паблытаць
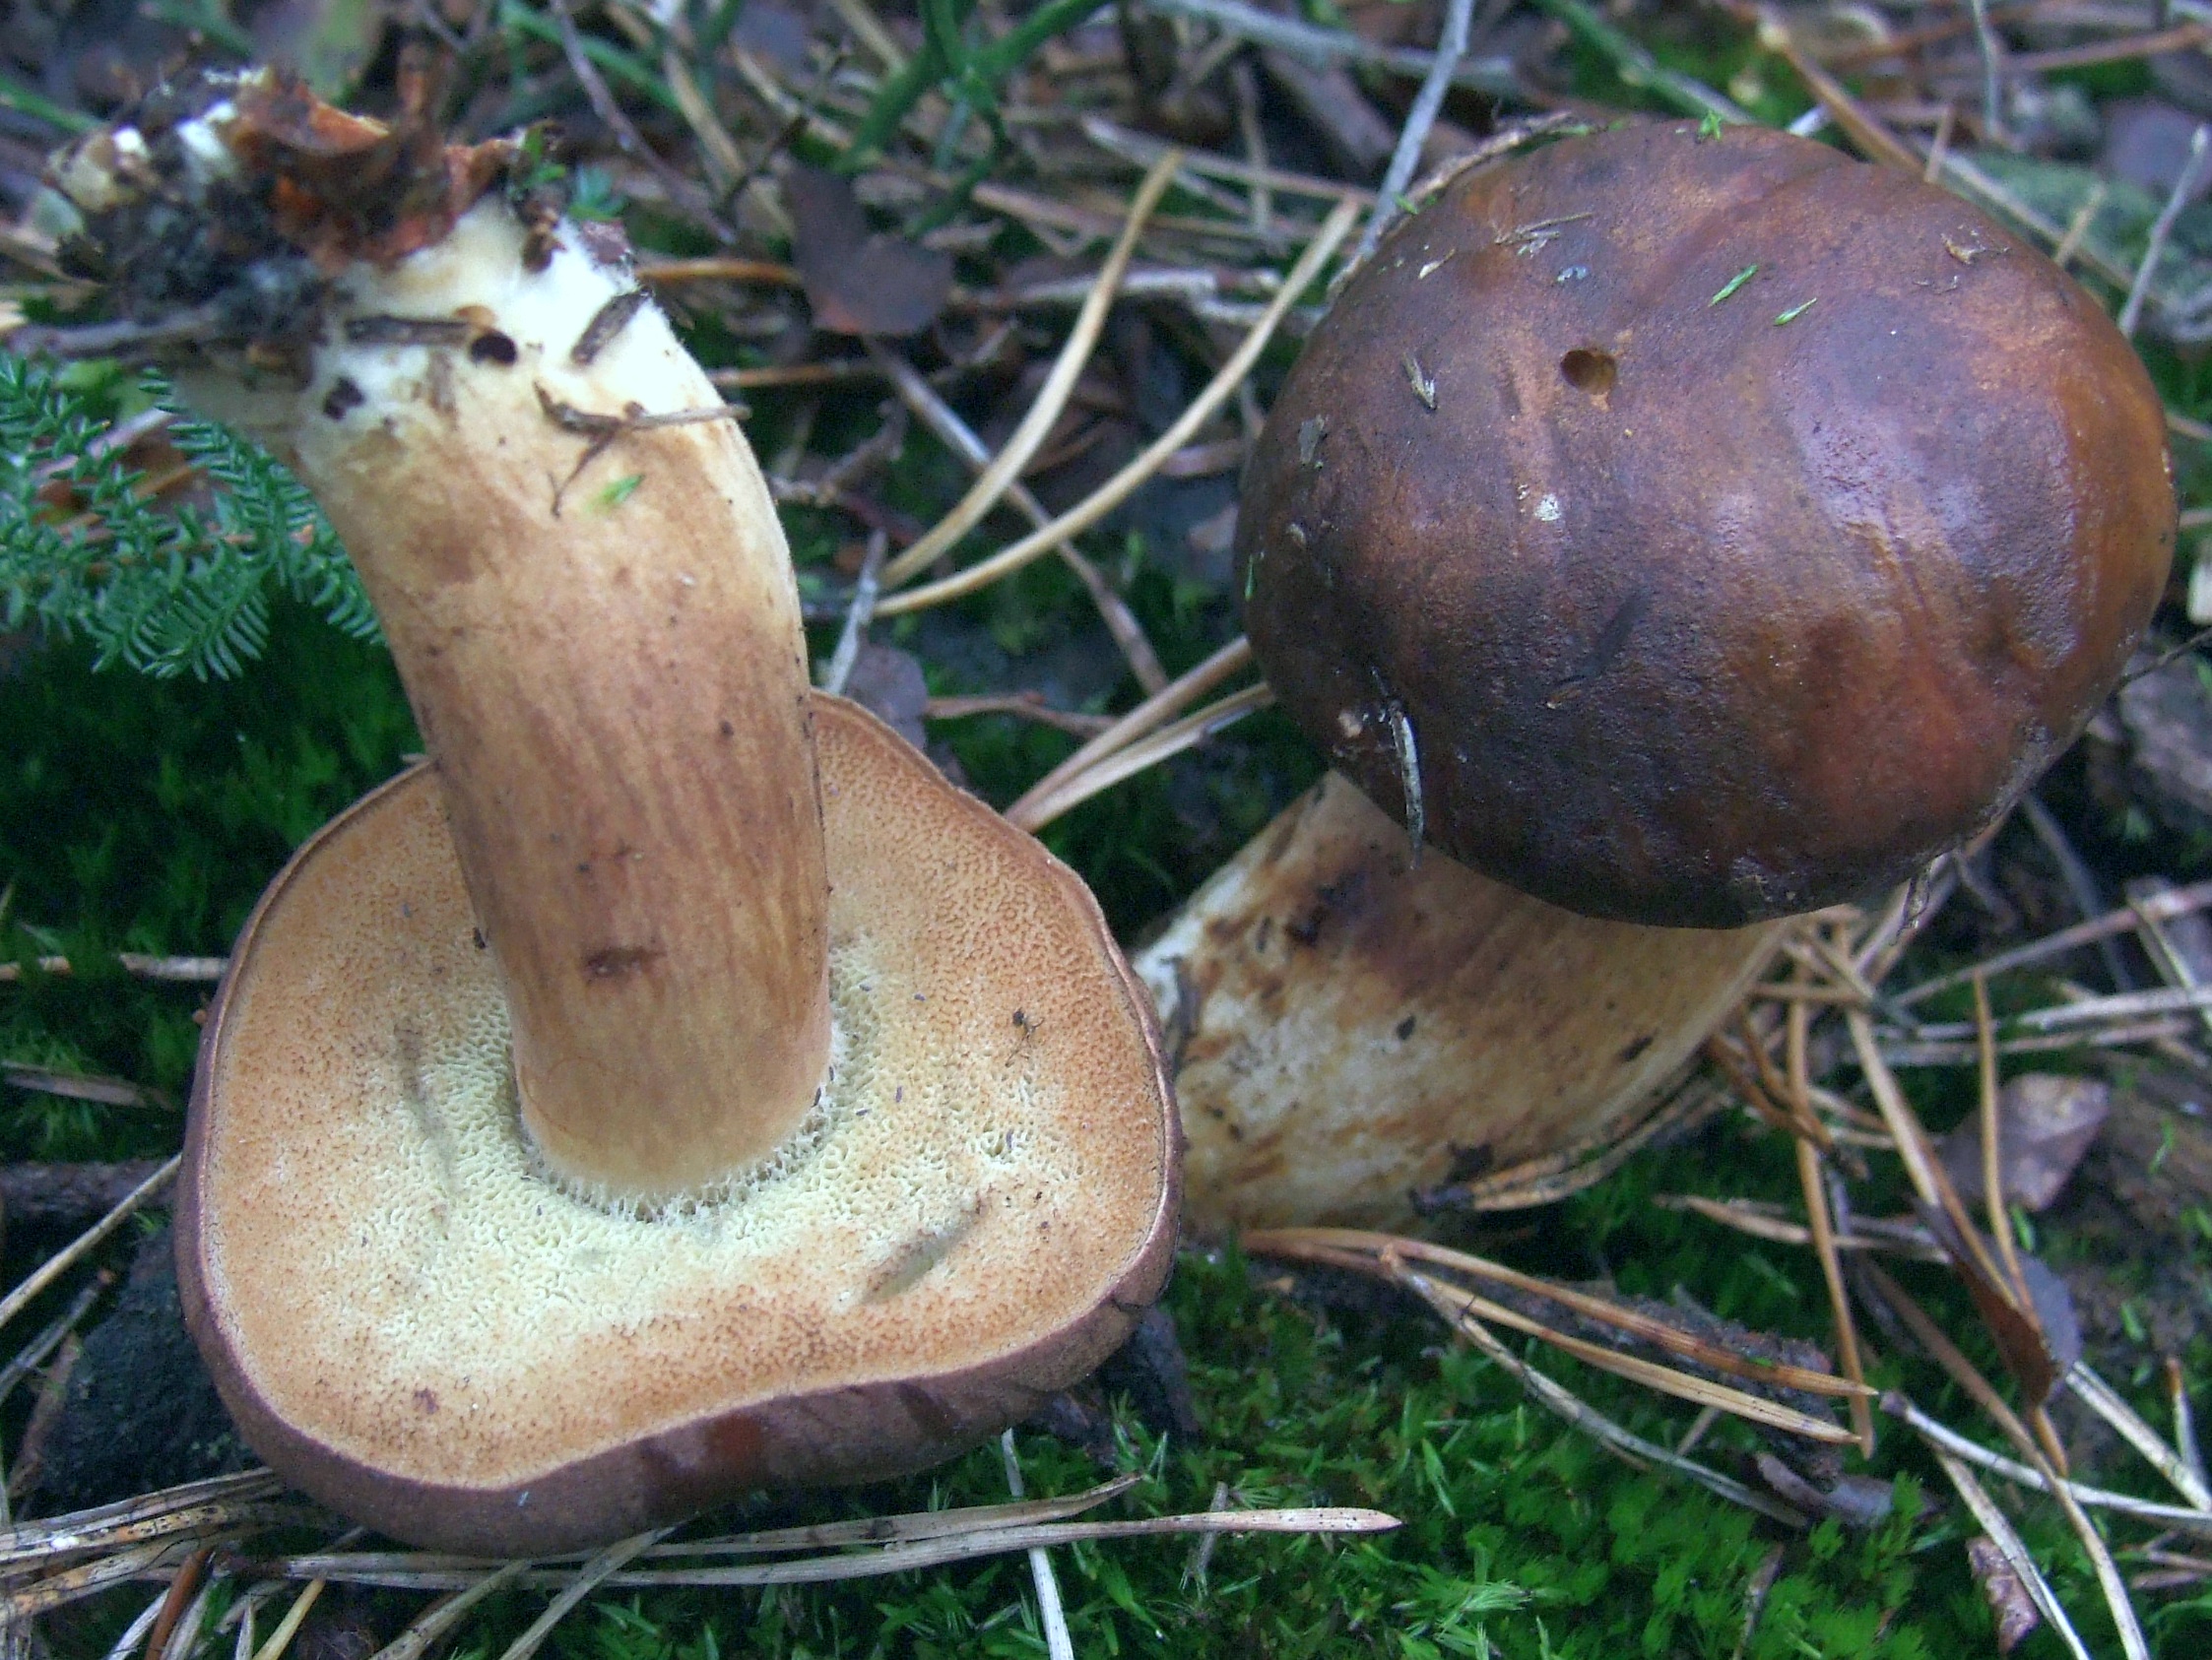
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Крыніца фота · CC BY-SA 4.0Imleria badia
Галоўныя адрозненні
Сінябаравік клінаножкавы (Cyanoboletus pulverulentus) рэагуе на дотык і пашкоджанне неадкладным, бурным і інтэнсіўным афарбоўваннем усіх частак пладовага цела ў глыбокі цёмна-сіні (гранатава-чорны) колер. У Imleria badia пасіненне менш раўнамернае і канцэнтруецца перш за ўсё над трубачкамі і ў верхняй частцы ножкі.
FAQ
Ці з'яўляецца сінябаравік клінаножкавы ядомым грыбам?
У старых атласах яго лічылі ядомым, але цяпер ужываць яго не рэкамендуецца. Даследаванні паказалі здольнасць гэтага віду да кумуляцыі мыш'яку, таму аўтары публікацый раяць устрымацца ад яго ўжывання.
Чаму не рэкамендуецца спажыванне гэтага віду?
Прычынай з'яўляюцца вынікі даследаванняў, якія паказваюць высокую кумуляцыю мыш'яку ў пладовых целах. З гэтай прычыны міколагі і аўтары навейшых прац рэкамендуюць устрымацца ад яго збору ў кулінарных мэтах.
Якія асноўныя апазнавальныя прыкметы гэтага грыба?
Поры і мякаць пасля націскання або разрэзу вельмі хутка сінеюць да цёмна-сіняга колеру. Трубачкі жоўтыя, а ножка бывае цыліндрычнай або звужанай каля асновы, жоўтай уверсе і чырванавата-карычневай унізе.
У якіх месцапражываннях сустракаецца гэты від?
Расце ў лісцевых, іглічных і мяшаных лясах. Яго таксама можна сустрэць па-за лесам, напрыклад, у парках і садах.
У якіх месяцах яго можна сустрэць?
У літаратуры перыяд з'яўлення пладовых цел пазначаецца паміж чэрвенем і лістападам. Розныя крыніцы ўказваюць больш вузкія дыяпазоны ў залежнасці ад мясцовых умоў надвор'я.
Чым ён адрозніваецца ад падгрыба карычневага?
Сінабаравік сінее значна хутчэй і мацней, набываючы цёмны адценне. Ён таксама мае жоўтыя поры і ножку ўверсе жоўтую, а дадолу чырвона-карычневую, з магчымай далікатнай структурай на верхавіне.
Як гучыць старая польская назва гэтага віду?
Раней у польскай літаратуры гэты від функцыянаваў пад назвай borowik klinowotrzonowy. Актуальную назву sinoborowik klinowotrzonowy рэкамендуе Польскае мікалагічнае таварыства (PTMyk).
Аматар
Ніз шапкі
- Даўжыня трубачак
- Даўжыня трубачак: да 15 mm.
Назвы і гісторыя
- Афіцыйная нацыянальная назва
- sinoborowik klinowotrzonowy
- Афіцыйная таксанамічная назва
- Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Былыя нацыянальныя назвы
- borowik klinowotrzonowy, borowik wrażliwy, borowik siniejący, borowik czerniejący, borowik omglony, podgrzybek omglony
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін паднімі шапку і разгледзь асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: карычневы.
- Адценне споравага адбітка
- Адценне споравага адбітка: аліўкава-карычневы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: амаль верацёнападобны. Форма споры: шырокаэліпсоідны.
- Паверхня споры
- Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 10–15,5 µm, шырыня 4–6 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
Рэакцыя глебы: нейтральная. - Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: Castanea sativa, Carpinus betulus, Fagus sylvatica, Quercus cerris, Quercus ilex, Quercus pubescens, Quercus robur або Tilia cordata.
Лісцевыя дрэвы ў наваколлі: бук, ліпа, каштан ядомы або дуб.
Лісцевыя дрэвы ў наваколлі: Quercus coccifera, Quercus pyrenaica, Quercus suber, вольха, бяроза або Ostrya. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: Pinus nigra, Pinus pinea, Pinus sylvestris, Cedrus libani або тсуга.
Хвойныя дрэвы ў наваколлі: піхта або Picea abies. - Кусты ў наваколлі
- Кусты ў наваколлі: Corylus avellana.
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Castanea (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Carpinus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Corylus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Fagus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Quercus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Tilia (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Pinus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Cedrus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Tsuga (агульны пералік партнёраў). - Тып жыўлення
- Тып жыўлення: эктамікарызны.
Гісторыя і культура
Таксанамічная гісторыя сіняка клінаножкавага цесна звязана з пачаткамі навачаснай мікалогіі і мае важны польскі гістарычны акцэнт. Гэты від быў упершыню навукова апісаны ў 1836 годзе пад назвай Boletus pulverulentus лекарам і міколагам Вільгельмам Апатоўскім. Апісанне выйшла ў яго прызнанай дысертацыі, прысвечанай баравіковым грыбам (Commentatio historico-naturalis de familia Fungorum Boletoideorum), апублікаванай у Берліне. Відавы эпітэт pulverulentus (лац. прыпудраны, заімглёны) адносіўся да далікатнай, быццам прыпудранай паверхні маладых пладовых цел, што таксама знайшло адлюстраванне ў польскай звычаёвай назве.
На працягу амаль двух стагоддзяў таксон функцыянаваў у літаратуры ў шырока разумелым родзе Boletus. Пералом у яго класіфікацыі адбыўся ў 2014 годзе, калі італьянскія даследчыкі Матрыа Джэлярдзі, Альфрэда Віцыні і Джампаола Сіманіні правялі філагенетычную рэвізію баравіковых і ўтварылі новы род Cyanoboletus, у які перанеслі від Апатоўскага. Назва новага роду была навеяная эфектнай, цёмна-сіняй каляровай рэакцыяй мякаці, якая акісляецца. Гэтыя змены адлюстроўваюць эвалюцыю сістэматычных ведаў у еўрапейскай мікалагічнай літаратуры.
Ядомасць і бяспека
Сіняк клінаножкавы (Cyanoboletus pulverulentus) — гэта ўмоўна-ядомы грыб, які патрабуе вялікай асцярожнасці з боку спажыўца. У сырым стане ён таксічны і выклікае моцнае раздражненне страўнікава-кішачнага тракта, што праяўляецца болямі ў жываце, млоснасцю і ванітамі. Спецыфічнай пагрозай для здароўя, звязанай з гэтым відам, з'яўляецца яго ўнікальная здольнасць да гіперакумуляцыі мыш'яку з субстрату, у тым ліку злучэнняў дыметыларсінавай кіслаты.
Абавязковай умовай для ўжывання з'яўляецца дбайная тэрмічная апрацоўка — адварванне на працягу як мінімум 15–20 хвілін са зліваннем адвару або грунтоўнае абсмажванне. Нягледзячы на прыгатаванне, не рэкамендуецца спажываць яго вялікімі порцыямі або рэгулярна; яго варта разглядаць выключна як грыб для спарадычнага ўжывання.
Мякаць сырога грыба мае прыемны, мяккі, злёгку арэхавы смак і далікатны водар. Пад уздзеяннем націскання і наразання адразу інтэнсіўна сінее, а затым цямнее, што пасля адварвання дае амаль чорны колер стравы.
Падыход да спажывання адрозніваецца ў залежнасці ад рэгіёна. У Польшчы, Чэхіі і Славакіі яго ахвотна збіраюць дасведчаныя грыбнікі як смачны хатні грыб, у той час як у Заходняй Еўропе (у тым ліку ў Германіі) з-за асцярог наконт утрымання мыш'яку санітарныя ўстановы раяць устрымлівацца і не рэкамендуюць яго збор.
Месцапражыванне і сустракальнасць
Сіняк клінаножковы (Cyanoboletus pulverulentus) сустракаецца ў Еўропе, дзе засяляе разнастайныя лісцевыя і мяшаныя лясы. У польскай мікабіёце лічыцца рэдкім таксонам і ўключаны ў нацыянальны чырвоны спіс 2006 г. са статусам R (рэдкі — патэнцыйна пад пагрозай). Сучасныя сістэматычныя і філагенетычныя даследаванні выразна адрозніваюць паўночнаамерыканскія знаходкі ад еўрапейскага віду, чый пацверджаны арэал ахоплівае еўрапейскія краіны.
Гэты від утварае эктамікарызу перш за ўсё з лісцевымі дрэвамі. Часцей за ўсё суправаджае дубы (Quercus), букі (Fagus sylvatica), грабы (Carpinus betulus) і ліпы (Tilia). Спарадычна адзначаецца пад іглічнымі дрэвамі, такімі як елкі ці хвоі. Па-за лясамі з'яўляецца ў гарадскіх парках, садах і прыдарожных алеях, а на поўдні Еўропы сустракаецца, між іншым, у цеплалюбных дубровах і дрэвастоях з каштанам пасяўным (Castanea sativa).
Аддае перавагу ўрадлівым, гліністым або пясчана-гліністым глебам. Пладовыя целы ахвотней за ўсё вырастаюць на аголенай, вільготнай зямлі — у прыдарожных равах, на адхілах лясных сцежак і ў месцах з тонкім пластом подсцілу. У Польшчы задакументаваны ў зводках дыяпазон з'яўлення пладовых цел ахоплівае месяцы з чэрвеня па лістапад (VI–XI), што акрэслівае часавыя межы зафіксаваных назіранняў, а не эмпірычнае размеркаванне колькасці.
Даследчык
Ядомасць і кулінарыя
Высновы крыніц: ядомасць, ужыванне і выкарыстанне
- Ядомасць
- Неядомы — крыніца вызначэння
Źródło bez opisu bibliograficznego · img.icon[src="/mykoatlas/noedible.png"]@title: Nejedlá houba
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Cyanoboletus pulverulentus (Opat.) Gelardi, Vizzini & Simonini (2014)
- Ранейшыя навуковыя назвы
- Boletus pulverulentus Opat.[31]
Gatunek został po raz pierwszy opisany naukowo w 1836 roku przez polskiego lekarza i mykologa Wilhelma Bogusława Opatowskiego pod nazwą Boletus pulverulentus. Przez dziesięciolecia klasyfikowano go w rodzaju Boletus lub zaliczano do podrodzaju Xerocomus. W 2014 roku włoscy mykolodzy Matteo Gelardi, Alfredo Vizzini i Giampaolo Simonini, w oparciu o analizy filogenetyczne sekwencji DNA, wykazali jego ewolucyjną odrębność i utworzyli nowy rodzaj Cyanoboletus (z greckiego kyanos – ciemnoniebieski, modry), wyznaczając sinoborowika klinowotrzonowego jako gatunek typowy. Łaciński epitet pulverulentus pochodzi od słowa pulvis (pył, proch) i oznacza „oprószony” lub „omglony”, co odnosi się do matowej, delikatnie aksamitnej powłoki młodych kapeluszy.
- Zakres ujęcia taksonomicznego
Cyanoboletus pulverulentus wskazany jako aktualna nazwa na stronie PTMyk; źródłowe przypisanie nazw do rekordu, bez rozstrzygnięcia zgodności zakresów dawnych nazw.
[31]
Экалогія і распаўсюджванне
- Частата знаходак
- Нідэрланды: Частата знаходак: нячасты. [1]
Лабараторная дыягностыка
Структураваныя даныя
Базідыі
- Колькасць спор на базідыі
- Колькасць спор на базідыі складае 4. [27]
Пражка
- Спражкі
- Спражкі: адсутны. [29]
Гіменіяльныя цыстыды
- Форма гіменіяльнай цыстыды
- Форма гіменіяльнай цыстыды: ад верацёнападобнай да бутэлькападобнай. [23]
- Наяўнасць гіменіяльных глеацыстыд
- Наяўнасць гіменіяльных глеацыстыд: наяўны. [23]
Наяўнасць гіменіяльных глеацыстыд: наяўны. [23] - Колькасць гіменіяльных глеацыстыд
- Колькасць гіменіяльных глеацыстыд: нешматлікія. [23]
Скурка шапкі
- Інкрустацыя гіф скуркі
- Інкрустацыя гіф скуркі: наяўны. [29]
- Колер пігменту скуркі
- Колер пігменту скуркі: карычневы. [29]
- Будова скуркі капялюшыка
- Будова скуркі капялюшыка: трыхадэрм. [29]
Будова скуркі капялюшыка: палісададэрма. [22] - Форма верхавіны канцавой клеткі скуркі шапкі
- Форма верхавіны канцавой клеткі скуркі шапкі: закруглены. [29]
- Даўжыня канцавой клеткі скуркі шапкі
- Даўжыня канцавой клеткі скуркі шапкі: 45–80 µm. [29]
- Форма канцавой клеткі скуркі шапкі
- Форма канцавой клеткі скуркі шапкі: цыліндрычны. [29]
- Шырыня канцавой клеткі скуркі шапкі
- Шырыня канцавой клеткі скуркі шапкі: 3–6,5 µm. [29]
Рэакцыі з рэактывамі
- Амілоідная рэакцыя
- Амілоідная рэакцыя: адмоўны. [23]
Паслядоўнасці ДНК
- Паслядоўнасць
Cyanoboletus pulverulentus; ITS; LT714707; PRM 944013
Споры
- Размяшчэнне атожылка рубчыка базідыяспоры
- Размяшчэнне атожылка рубчыка базідыяспоры: бакавы (моцна). [23]
- Форма верхавіны споры
- Форма верхавіны споры: востры. [23]
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: бледна-жоўты. [29]
- Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 2,6–3. [29]
- Форма споры
- Форма споры: вузкамігдалепадобны. [23]
Форма споры: амаль верацёнападобны. [17]
Форма споры: шырокаэліпсоідны. [17] - Паглыбленне над рубчыкам базідыяспоры
- Паглыбленне над рубчыкам базідыяспоры: выразнае. [23]
- Паверхня споры
- Паверхня споры: гладкі. [17]
- Таўшчыня сценкі споры
- Таўшчыня сценкі споры: таўстасценны. [29]
Трама гіменафора
- Тып трамы гіменафора
- Тып трамы гіменафора: білатэральная (падтып Boletus). [32]
Матэрыял і метады даследаванняў
- Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 12,5–14,5 µm (skrajnie do 15,5 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 10–14 µm [30] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- Materiał badania: Author species account and illustrated BAR2000072503; two listed collections are retained separately. 4,2–5,2 µm (skrajnie do 5,4 µm) [29]
Materiał badania: Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection. 4–6 µm [30]
Metody i zapisy źródłowe — European B. pulverulentus in a comparative paragraph; published European literature and author observations, without a named result-bearing voucher.
Liczba zarodników na jednej podstawce — zapis źródłowy: „European B. pulverulentus: the shorter and wider 4-spored basidia” [27]
Metody i zapisy źródłowe — C. pulverulentus PO-F2601, author-labelled SEM panels 4c–f.; C. pulverulentus PO-F2601, author-labelled KOH panel 4h.; Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.; Conditional author identification-key branch 3 for C. pulverulentus.
Numer okazu: PO-F2601.
Materiał źródłowy: C. pulverulentus PO-F2601, author-labelled KOH panel 4h.
Numer okazu: PO-F2601.
Materiał źródłowy: Taxon-level qualitative diagnosis of European/Macaronesian C. pulverulentus.
Materiał źródłowy: Conditional author identification-key branch 3 for C. pulverulentus.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Author-labelled SEM panels; section 2.2 lists instruments collectively, without assigning one to each panel.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Opis metody w źródle: Figure 4h; concentration/objective for this panel unreported.
Położenie wyrostka wnęki bazydiospory — zapis źródłowy: „Cyanoboletus pulverulentus is macroscopically characterised by small to medium-sized basidiomes, growing solitary or in groups. The pileus is rather variable in colouration: yellow, buff brown, olivaceus brown to raspberry red, with a silky to slightly viscous surface and an acute pileus margin; the stipe is yellow, sometimes with brown or reddish colours in the lower part, rarely with a reticulum in the upper part [2]; tubes are lemon yellow; the context is yellow, sometimes reddish in the stipe of aged basidiomes, which turns intense blue with a turquoise tint (Figure 3). Microscopically, this species is characterised by narrow-amygdaliform, subfusiform-subamygdaliform, or amygdaliform basidiospores, often with a strongly lateralised apiculus (hilar appendix) and pronounced suprahilar depression, (10.91) 12.29 ± 0.9 (13.46) × (4.53) 4.87 ± 0.32 (5.39) µm, with the largest Q value of the European species of Cyanoboletus—(2.41) 2.53 ± 0.18 (2.73) (Figure 4c,d, Figure 5 and Figure 6). Thriving in acidic to neutral soils across temperate European and Macaronesian forests, mycorrhizal with broadleaves and conifers. It also differs from other European Cyanoboletus species and C. cyaneitinctus by arsenic hyperaccumulation ([40] and this study).” [23]
Kształt cystydy hymenialnej; Kształt szczytu zarodnika; Kształt zarodnika; Zagłębienie nad wnęką bazydiospory — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Obfitość gleocystyd hymenialnych; Obecność gleocystyd hymenialnych — zapis źródłowy: „3. Basidiospores often narrowly amygdaliform, with pronounced lateralised apiculus, pronounced suprahilar depression, and with relatively acute apex; gloeocystidia sparse………………………………………………………………………………………………………………………………………………………………………………………………………..C. pulverulentus” [23]
Obecność gleocystyd hymenialnych — zapis źródłowy: „Figure 4The microscopic features of target Cyanoboletus species: (a) typical long, narrow-subamygdaliform basidiospore of C. mediterraneensis under SEM (PO-F2442); (b) typical short, blunt-ellipsoidal basidiospore of C. poikilochromus under SEM (MG1004); (c) typical narrow-amygdaliform basidiospore of C. pulverulentus under SEM with significant suprahilar depression, lateralised apiculus, and with relatively acute apex (PO-F2601); (d) basidiospores of C. pulverulentus under SEM (PO-F2601); (e,f) hymenophore of C. pulverulentus displaying fusiform-lageniform cystidia under SEM (PO-F2601); (g) typical hymenophore of C. poikilochromus with abundant narrow-cylindrical gloeocystidia (MG1004); (h) gloeocystidium of C. pulverulentus with KOH (PO-F2601); (i) gloeocystidium of C. poikilochromus with brilliant cresyl blue (IB 19960585, paratype); (j) gloeocystidium of C. poikilochromus with KOH (GS63); (k) crystal structure from the hymenophore of C. poikilochromus under SEM (MG1004). Bars: 2 μm (a–d), 10 μm (e,f,h–j), and 20 μm (g,k). Micrographs: (a–h,k) V. Fachada, (i) A. Yu. Biketova, and (j) G. Simonini.” [23]
Metody i zapisy źródłowe — Explicit species-level anatomical attribution, not a result assigned to one voucher.
Typ tramy hymenoforu — zapis źródłowy: „The true boletoid trama … Boletus pulverulentus” [32]
Metody i zapisy źródłowe — Author species account and illustrated BAR2000072503; two listed collections are retained separately.
Pochodzenie materiału: Northern Spain: Cantabria and Navarra; exact two collection records retained separately..
Inkrustacja strzępek skórki — zapis źródłowy: „finamente incrustadas” [29]
Barwa pigmentu skórki — zapis źródłowy: „pigmento intracelular marrón” [29]
Organizacja skórki kapelusza — zapis źródłowy: „tricoderma” [29]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „elementos terminales … cilindráceos, con al ápice redondeado, de calibre 45–80 × 3–5.5 (6.5) µm” [29]
Barwa zarodnika w mikroskopie — zapis źródłowy: „amarillo pálidas” [29]
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „12.5–14.5(15.5) × 4.2–5.2(5.4) µm; Q=2.6–2.9(3)” [29]
Grubość ściany zarodnika — zapis źródłowy: „paredes espesas” [29]
Metody i zapisy źródłowe — Boris Assyov authorial species account; no voucher-specific microscopic result supplied.
Organizacja skórki kapelusza — zapis źródłowy: „Pileipellis a palisadoderm of cylindrical, finely incrusted cells.” [22]
Metody i zapisy źródłowe — Two Dutch collections: Valburg, Oosterhout, 26 Sept. 1971, Schreurs346; Bunde, Bunderbos, 21 Sept.1979, Schreurs343. Published pooled spore ranges, n=20, ten spores per collection.
Pochodzenie materiału: Netherlands, Valburg/Oosterhout and Bunde/Bunderbos..
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Spores (n=20) 10.0–14.0 × 4.0–6.0 µm” [30]
Metody i zapisy źródłowe — First Nature focal species spore description.
Kształt zarodnika; Powierzchnia zarodnika — zapis źródłowy: „Spores: Subfusiform to broadly ellipsoidal, smooth.” [17]
Верыфікацыя прысутнасці — абсяг і абмежаванні
Materiał: Polska kolekcja autora pod źródłową nazwą Boletus pulverulentus; nie przeniesiono danych azjatyckich segregatów.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[19]Агульныя абмежаванні прачытання крыніцы
Ograniczenia: Zasięg rewizji 2026 zachowano jako przegląd opublikowanych stwierdzeń, nie 34 niezależne odczyty cytowanych prac i nie 34 nowe potwierdzenia DNA. Rosja oznacza raport z części europejskiej. Nie przypisano Polski do zbiorczego akapitu fenologii; pozostałe kontynenty i oznaczenia z gwiazdką pozostają poza potwierdzonym zasięgiem tego ujęcia z powodu zastrzeżeń samych autorów. Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[23]Абсяг апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Прававая аснова і абсяг ацэнкі
Найважнейшыя рэчывы і іх дзеянне
Cyanoboletus pulverulentus wyróżnia się wśród wszystkich europejskich grzybów rurkowych wyjątkową zdolnością gromadzenia arsenu w owocnikach, co stało się przedmiotem szczegółowych badań chemicznych i toksykologicznych:
Hiperakumulacja arsenu i formy chemiczne (spesjacja): W badaniu analitycznym z 2018 roku (Bräuer i in., opublikowanym w czasopiśmie Food Chemistry) oznaczono całkowitą zawartość arsenu w 39 kolekcjach początkowo rozpoznanych jako C. pulverulentus (36 kolekcji z Czech oraz po jednej z Francji, Portugalii i USA). Całkowite stężenie arsenu wynosiło średnio 250 mg/kg suchej masy (odchylenie standardowe SD = 260 mg/kg), z medianą 160 mg/kg i zakresem od 2,4 do 1300 mg/kg suchej masy. Jedną kolekcję z USA autorzy zaliczyli później do innego, prawdopodobnie jeszcze nieopisanego gatunku z rodzaju Cyanoboletus; podane statystyki dotyczą pierwotnej grupy 39 kolekcji i nie były przeliczane osobno dla pozostałych 38.
Skład chemiczny związków arsenu i rozkład w owocniku: W wyciągach wodnych z badanych owocników kwas dimetyloarsenowy (DMA – dimethylarsinic acid) wykryto we wszystkich 39 kolekcjach (100%), gdzie stanowił on od 79% do 110% (i ponad 99% wykrytych frakcji rozpuszczalnych) wyekstrahowanego arsenu. Zastosowana analiza spesjacyjna poszczególnych form chemicznych dała sumaryczny wynik odpowiadający 43–110% oznaczenia arsenu całkowitego (średnio 71 ± 9%). Odsetek ten stanowi analityczne porównanie dwóch niezależnych procedur pomiarowych, a nie bezpośredni udział DMA w całym arsenie czy wyznaczoną dawkę dla konsumenta. W 8 z 39 przebadanych kolekcji stwierdzono ponadto śladowe ilości kwasu monometylarsenowego (MA, 0,04–0,19% wyekstrahowanego As). Zastosowana metoda analityczna nie wykryła obecności nieorganicznego arsenu (arsenianów ani arseninów), co oznacza poziom poniżej granicy wykrywalności aparatury, lecz nie dowodzi jego absolutnego braku. Skuteczność ekstrakcji laboratoryjnej była niepełna. W tym samym badaniu (Bräuer i in. 2018) analizowano również szczegółowy rozkład arsenu w poszczególnych częściach owocnika na przykładzie dwóch okazów (Fig. 3); wykazano, że większość zakumulowanego arsenu koncentrowała się w hymenium (warstwie rurek z zarodnikami). Wynik ten oparto na pomiarze dwóch owocników i nie stanowi on podstawy do wyznaczania procedur obróbki kulinarnej.
Wyniki badań toksykologicznych DMA i ocena ryzyka: Kwas dimetyloarsenowy jest organicznym związkiem arsenu, sklasyfikowanym przez Międzynarodową Agencję Badań nad Rakiem (IARC) w Grupie 2B jako substancja przypuszczalnie rakotwórcza dla ludzi. Klasyfikacja ta dotyczy czystego związku chemicznego, a nie całego grzyba czy pojedynczego posiłku. W osobnym badaniu laboratoryjnym (Yamanaka i in. 2001) podawanie samego związku DMA myszom drogą pokarmową doprowadziło do podwyższenia poziomu 8-oxo-dG (8-okso-2'-deoksyguanozyny – uznanego biomarkera oksydacyjnych uszkodzeń materiału genetycznego DNA) w skórze, płucach, wątrobie, pęcherzu moczowym oraz w moczu zwierząt. Jako potencjalny mechanizm uszkodzeń autorzy rozważali powstawanie wolnego rodnika dimetyloarsenowego. Badanie to dotyczyło podawania czystego związku modelowym gryzoniom, w związku z czym wynik ten nie stanowi bezpośredniego dowodu wystąpienia takich samych skutków po zjedzeniu owocnika grzyba przez człowieka.
W oparciu o Margines Ekspozycji (MoE) badacze (Bräuer i in. 2018) przeanalizowali scenariusze modelowe dla osoby o masie około 70 kg, szacując orientacyjne roczne spożycie świeżych owocników na poziomie około 90 g/rok przy medianie stężenia DMA (odpowiadającej ok. 12 mg As/kg świeżej masy), 12 g/rok przy stężeniu maksymalnym oraz 10 kg/rok przy stężeniu minimalnym. Są to czysto teoretyczne kalkulacje modelowe ryzyka, a nie normy dietetyczne czy progi bezpieczeństwa. W konkluzji zespół Simone Bräuer zalecił, aby gatunek ten nie był już rekomendowany jako jadalny, odradzając regularne spożywanie w ilości przekraczającej 90 g świeżej masy rocznie ze względu na potencjał rakotwórczy DMA. Z kolei autorzy śródziemnomorskiej rewizji taksonomicznej z 2026 r. (Biketova i in.) sformułowali bardziej kategoryczne stanowisko, zalecając całkowite powstrzymanie się od konsumpcji grzybów z rodzaju Cyanoboletus.
Месцапражыванне і сустракальнасць
Месцапражыванне, рэгіён і пара года
Sinoborowik klinowotrzonowy występuje w Europie i Makaronezji w strefie lasów umiarkowanych, tworząc mikoryzę z drzewami liściastymi (głównie dębami i bukami), a także sporadycznie z drzewami iglastymi (świerk). Spotykany jest w lasach liściastych, mieszanych, a także na obrzeżach dróg leśnych i w starych parkach. Preferuje gleby wilgotne, gliniaste, ilaste lub piaszczysto-gliniaste, o odczynie od słabo kwaśnego do obojętnego lub zasadowego. W opisach z Holandii wskazuje się na gleby wilgotne i umiarkowanie bogate w składniki odżywcze. W Polsce należy do grzybów rzadkich i rozproszonych; współczesne inwentaryzacje mikologiczne odnotowały jego występowanie m.in. w 2020 roku w rezerwacie przyrody „Paraszyńskie Wąwozy” na Pomorzu (w kwaśnej buczynie niżowej). Owocniki wyrastają od lata do jesieni (od maja/czerwca do listopada).
Пацверджаны арэал распаўсюджання
Усе тэрыторыі пацверджаны ў захаваных зыходных даных.
| Краіна | Рэгіёны і месцазнаходжанні | Утварэнне пладовых цел | Крыніцы |
|---|---|---|---|
| Андора | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Аўстрыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Бельгія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Балгарыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Швейцарыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Чэхія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Германія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Данія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Іспанія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Францыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Вялікабрытанія | Рэгіёны не вызначаны ў захаваных даных | VII–X |
|
| Грэцыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Харватыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Венгрыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Ірландыя | Рэгіёны не вызначаны ў захаваных даных | VII–X |
|
| Іран | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Італія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Літва | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Люксембург | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Малдова | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Паўночная Македонія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Мальта | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Нідэрланды | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Нарвегія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Польшча | Белавежская пушча | VI–XI |
|
| Партугалія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Румынія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Сербія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Расія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Швецыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Славенія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Славакія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Турцыя | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Украіна | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
Крыніцы
- NDFF Verspreidingsatlas: Cyanoboletus pulverulentus
- cyanoboletus_pulverulentus.deep20261014.collection-documentation
- Weryfikacja polskiego statusu prawnego sinoborowika, 15.10.2026
- Pat O’Reilly, Cyanoboletus pulverulentus — opis terenowy
- Pierwotny zapis źródłowy — P0: cyanoboletus_pulverulentus
- src-assyov-boletales-cyano
- src-biketova-2026
- Rozporządzenie Ministra Środowiska z 9 października 2014 r., Dz.U. 2014 poz. 1408.
- Obwieszczenie Ministra Zdrowia z 13 lutego 2026 r., Dz.U. 2026 poz. 258; jednolity tekst rozporządzenia w sprawie grzybów dopuszczonych do obrotu.
- src-gelardi-2013
- src-munoz-2022-cyano
- src-oolbekkink-1991
- PTMyk — sinoborowik klinowotrzonowy, nazwa aktualna i historyczne
- src-sutara-2005