
Jadalny

Wymaga obróbki

Ustaw lokalizację, żeby zobaczyć dane dla swojego regionu.
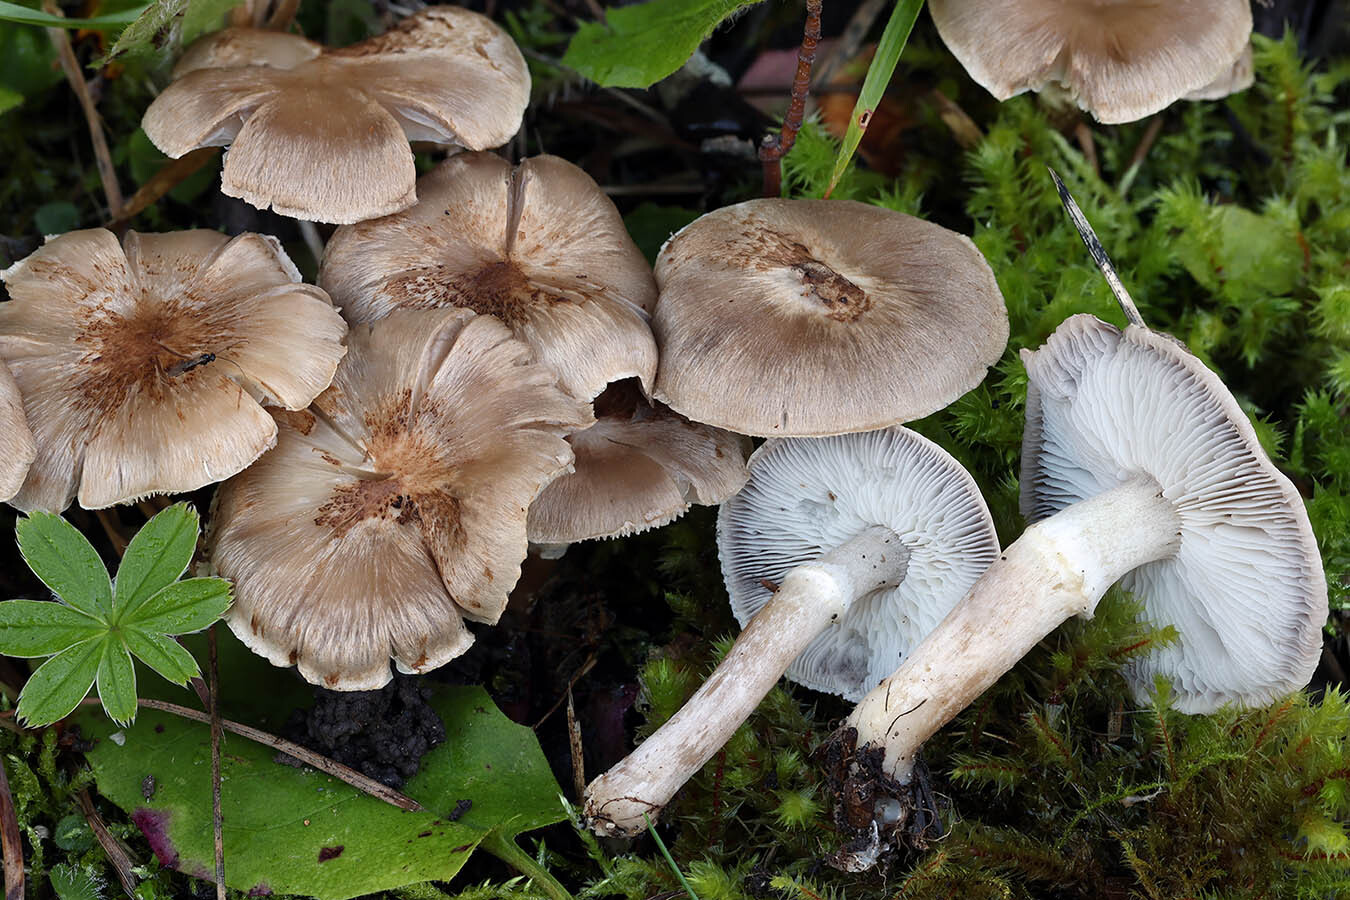
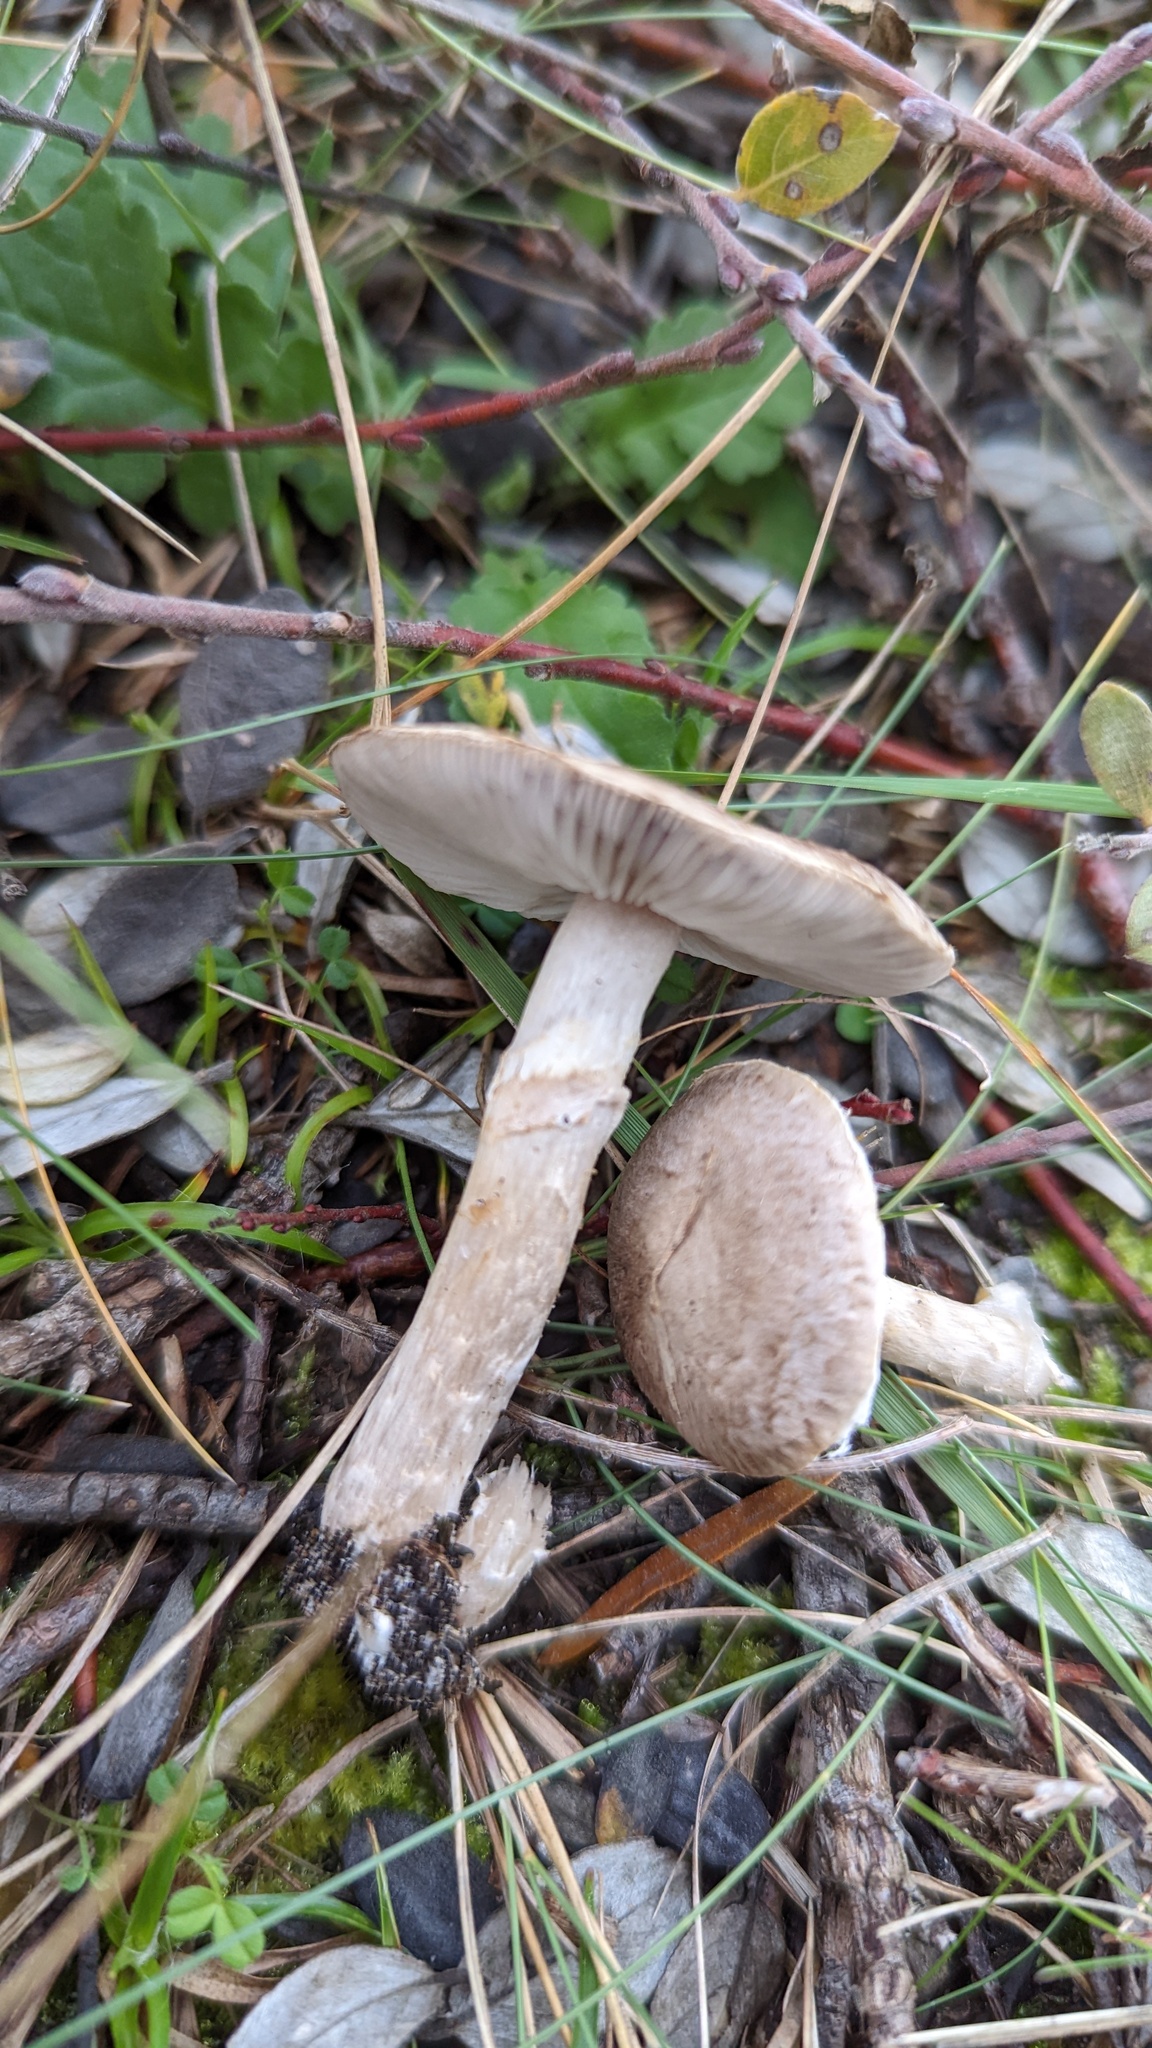
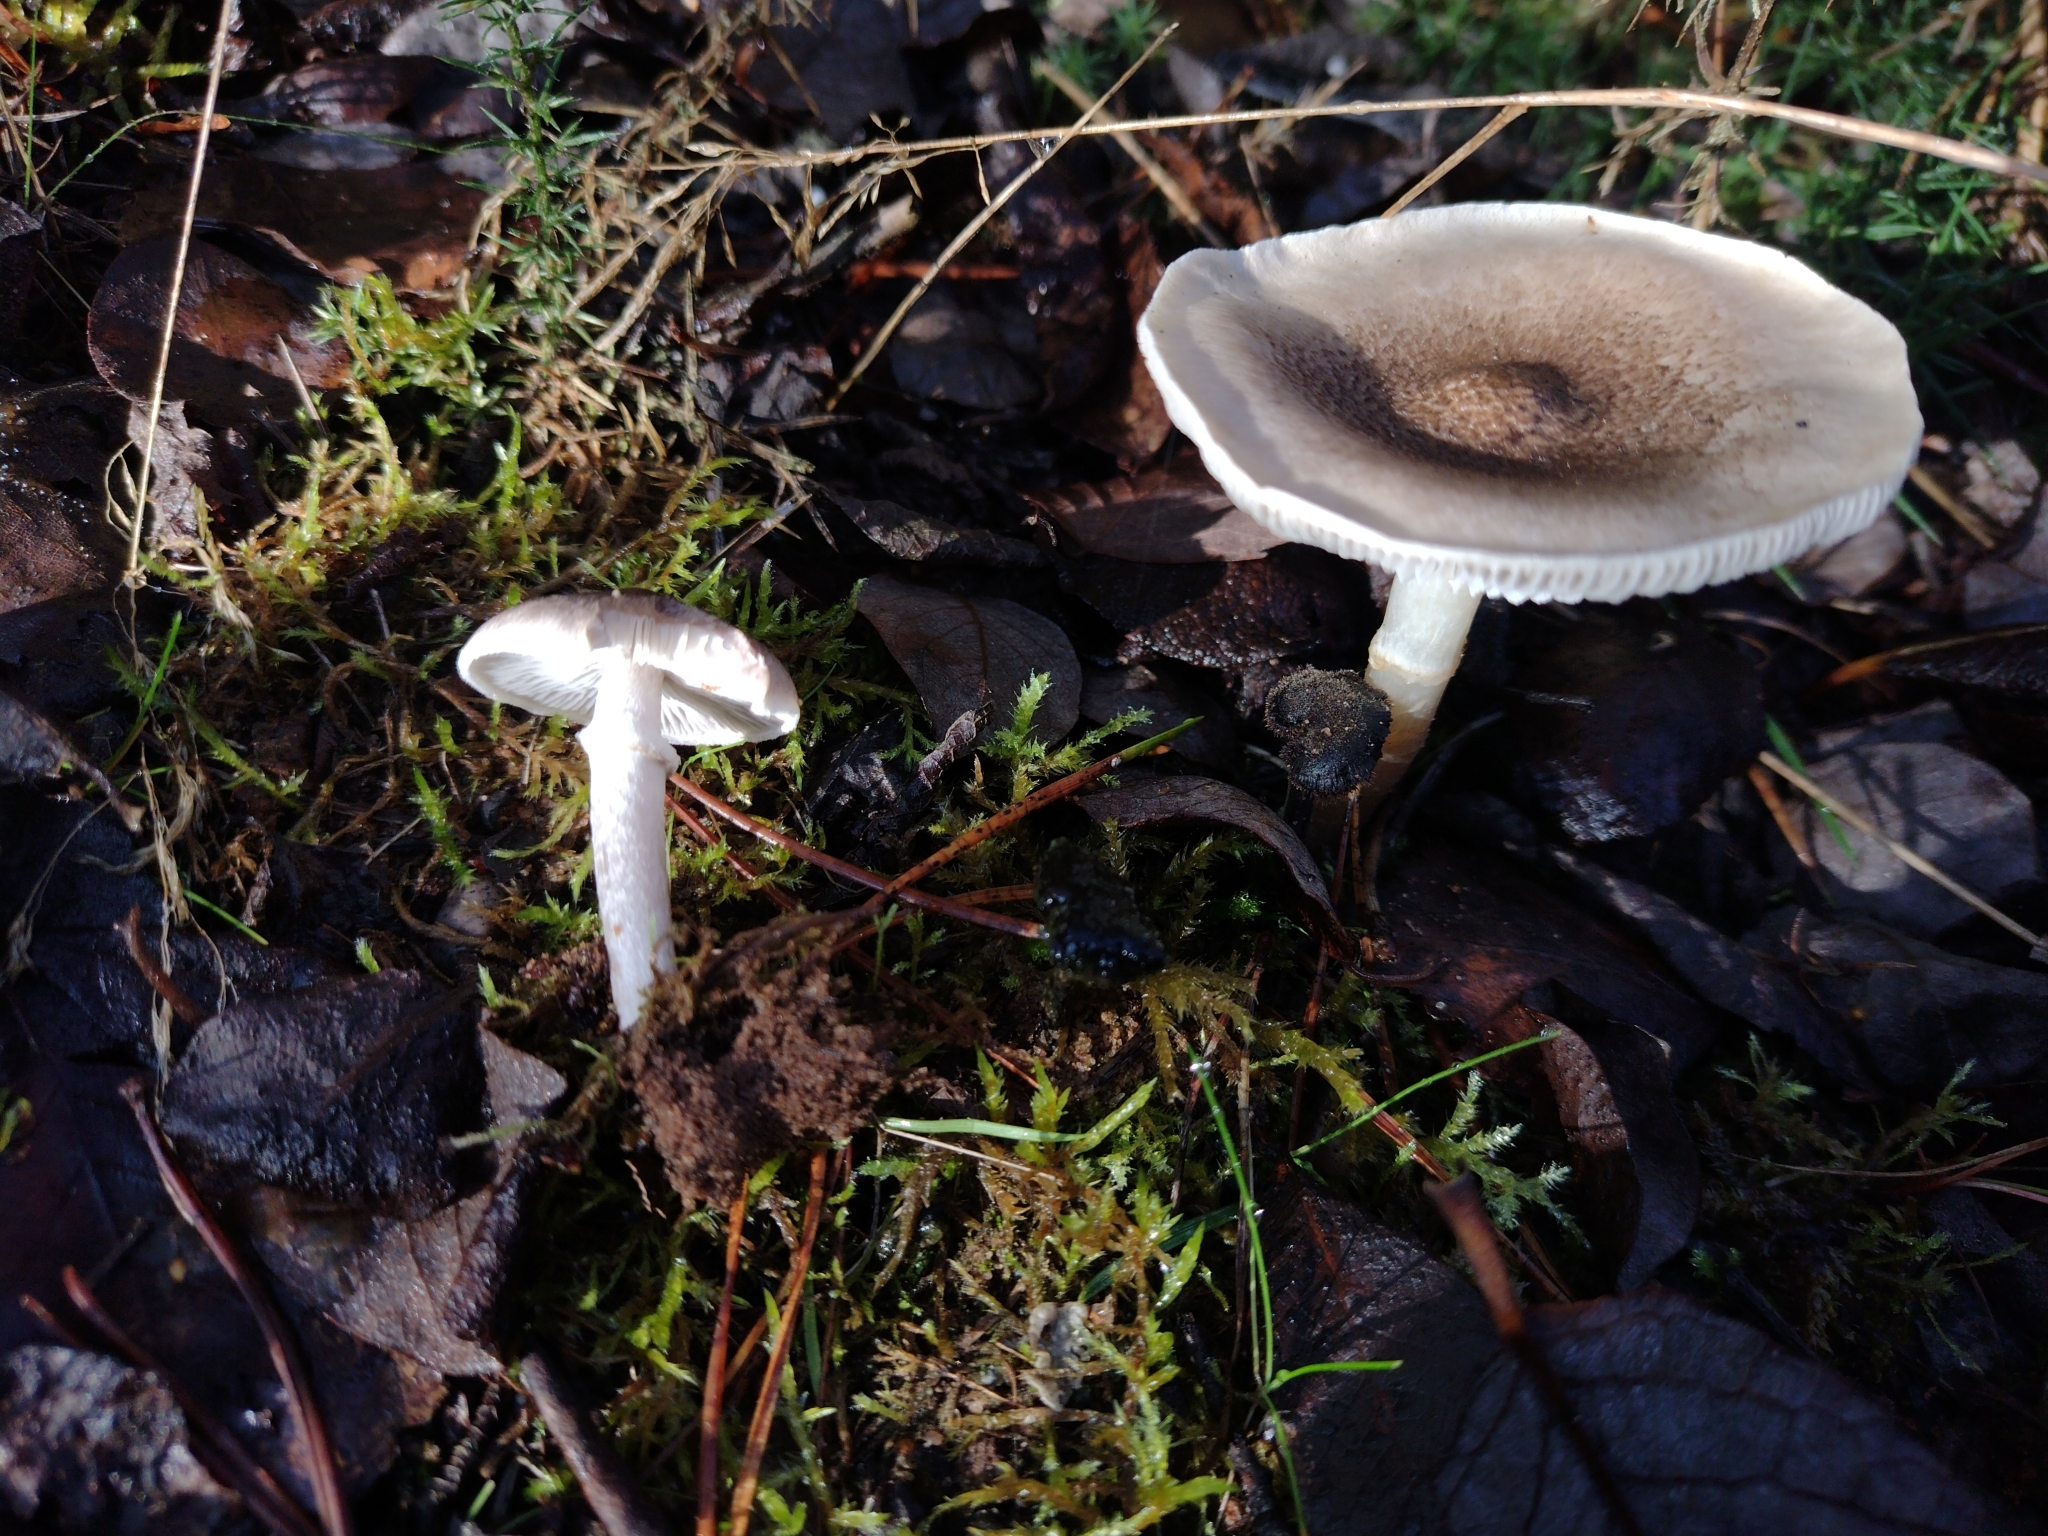
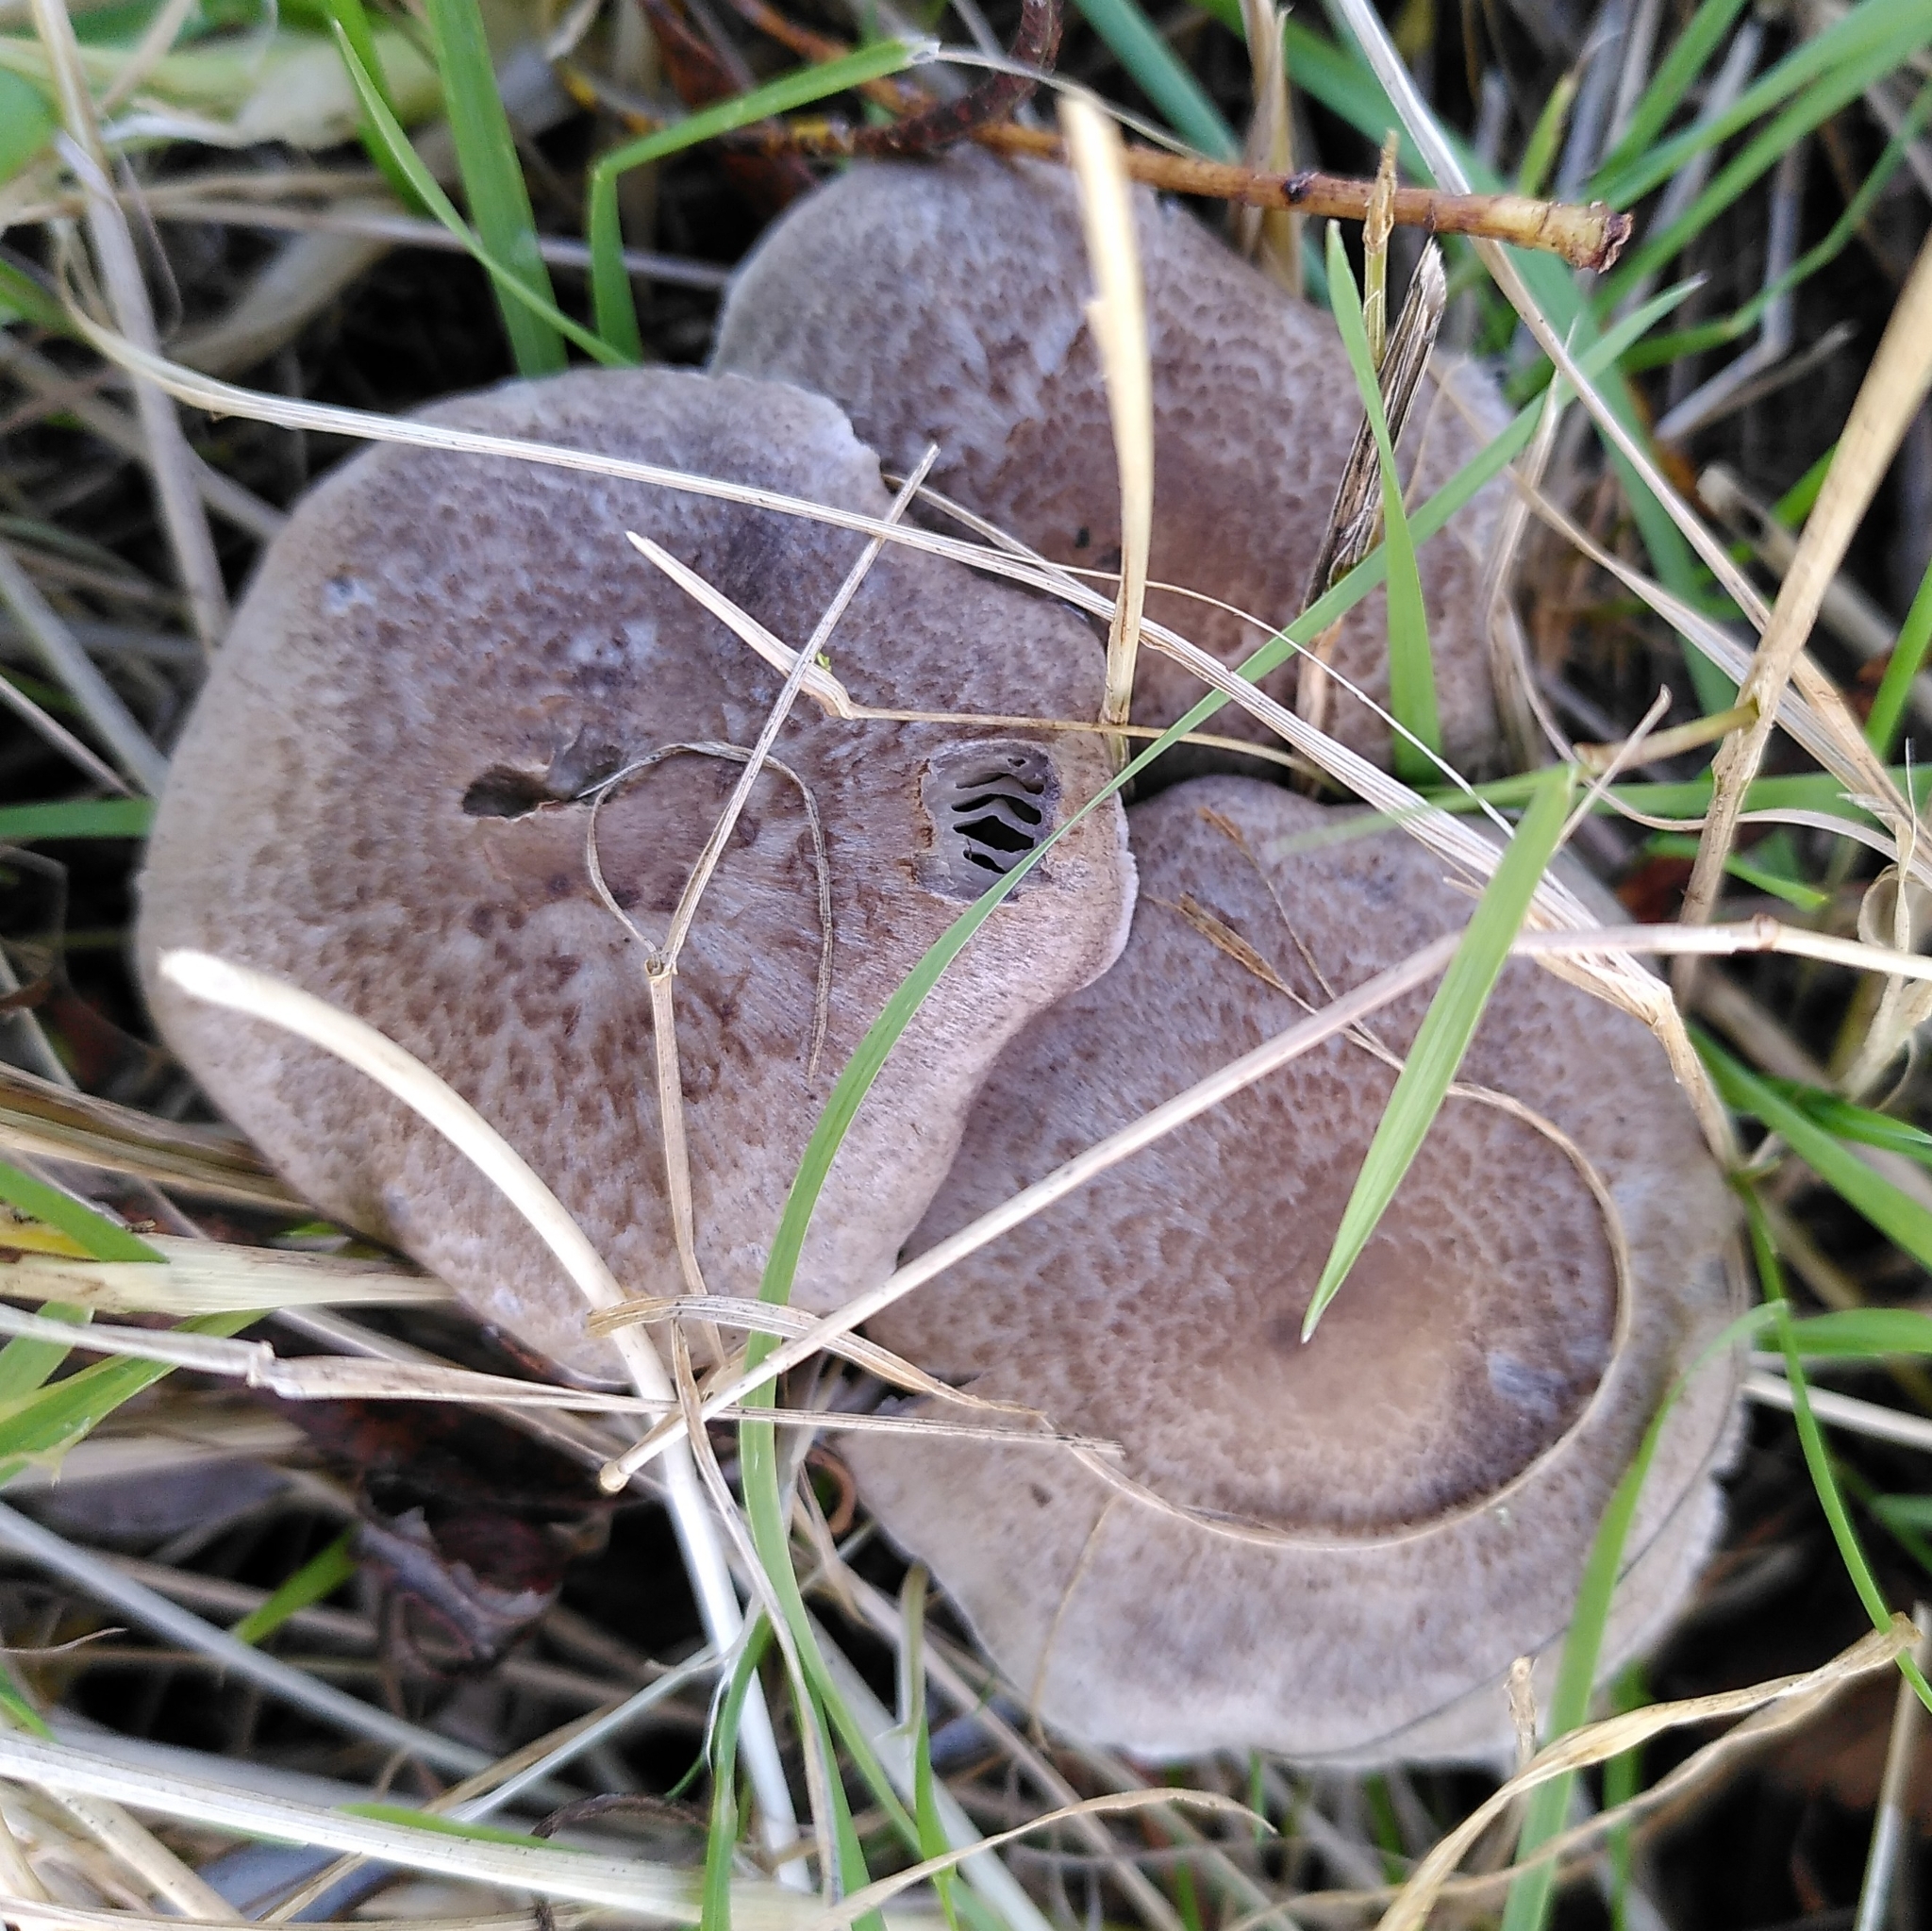
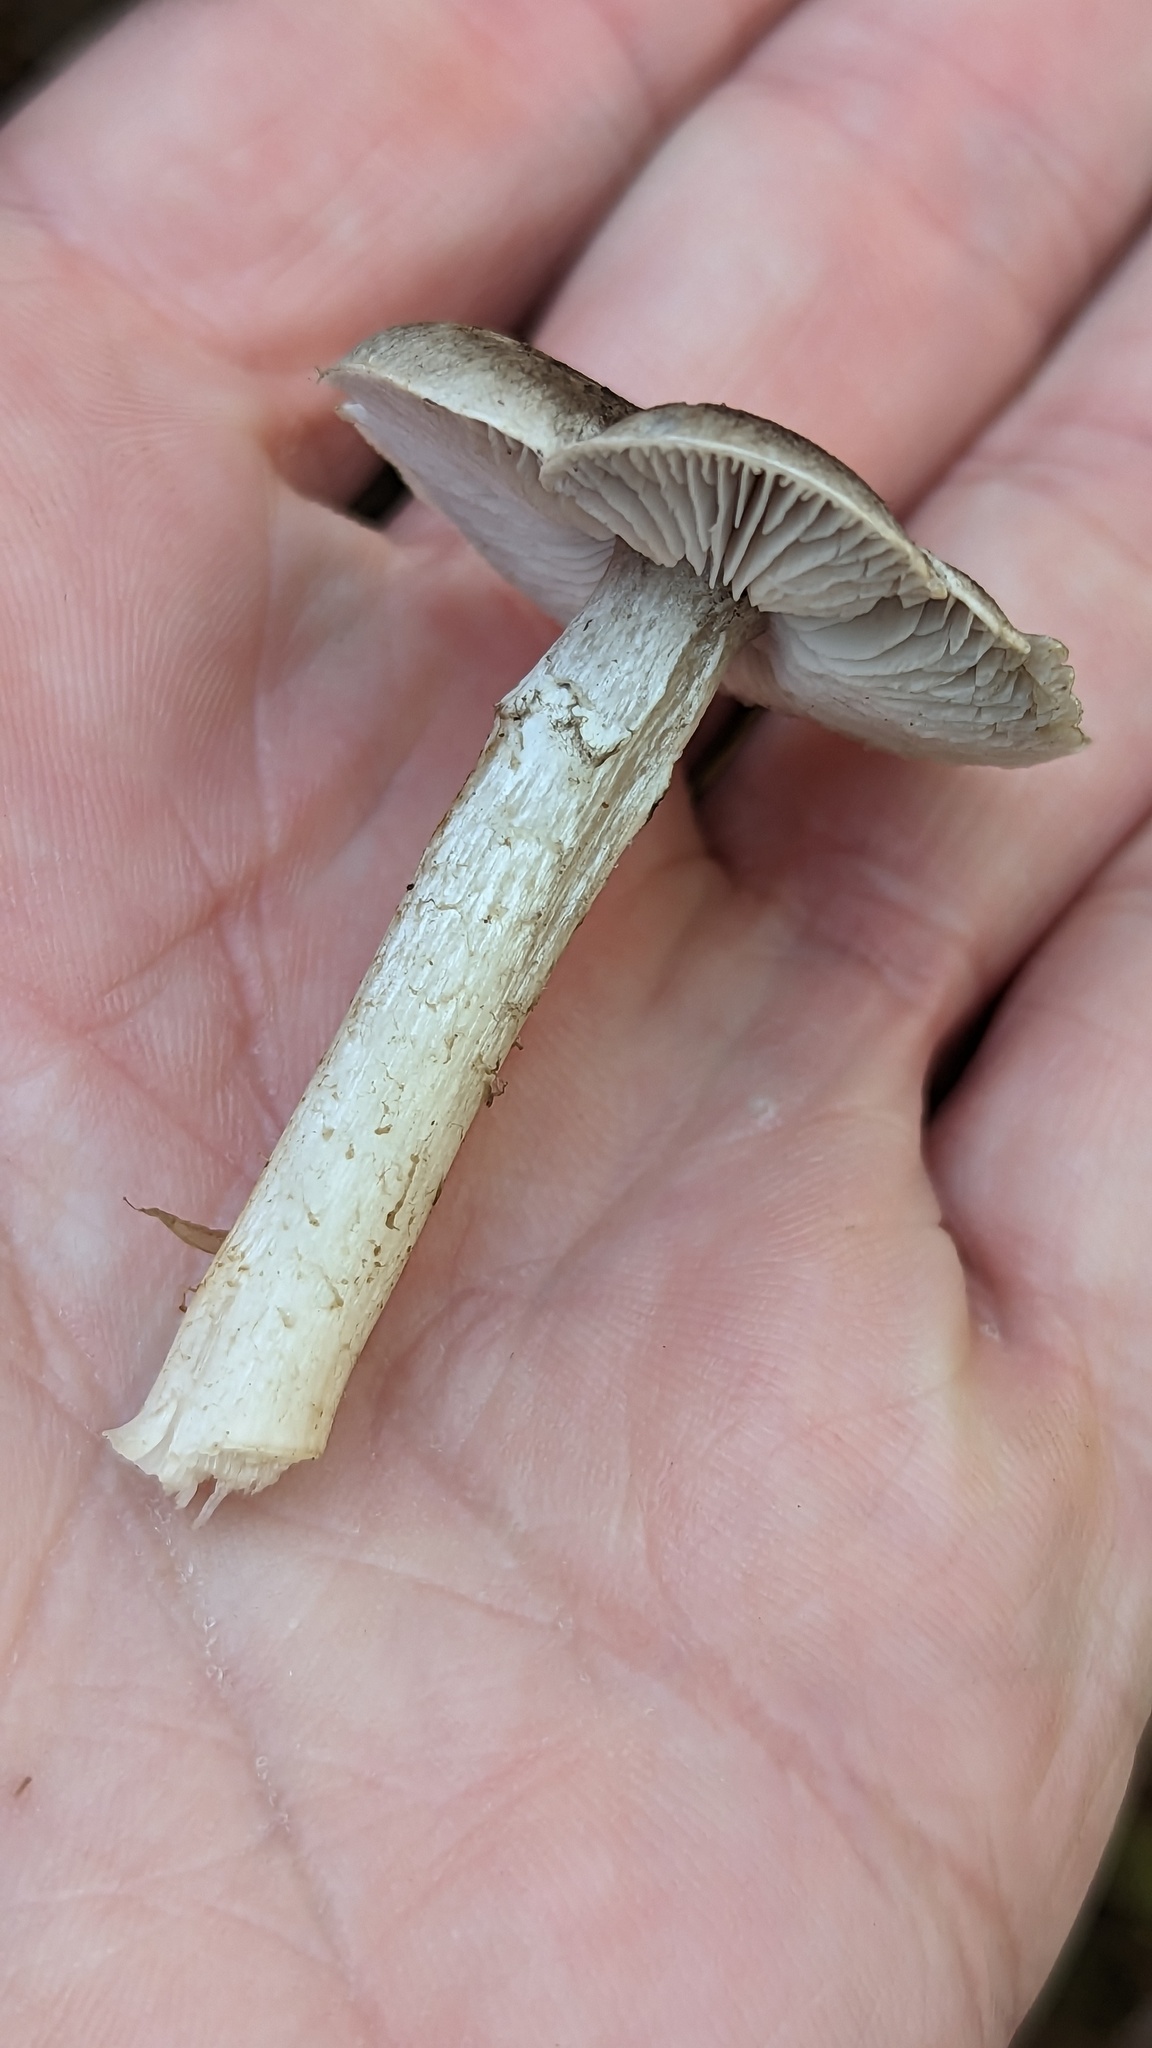
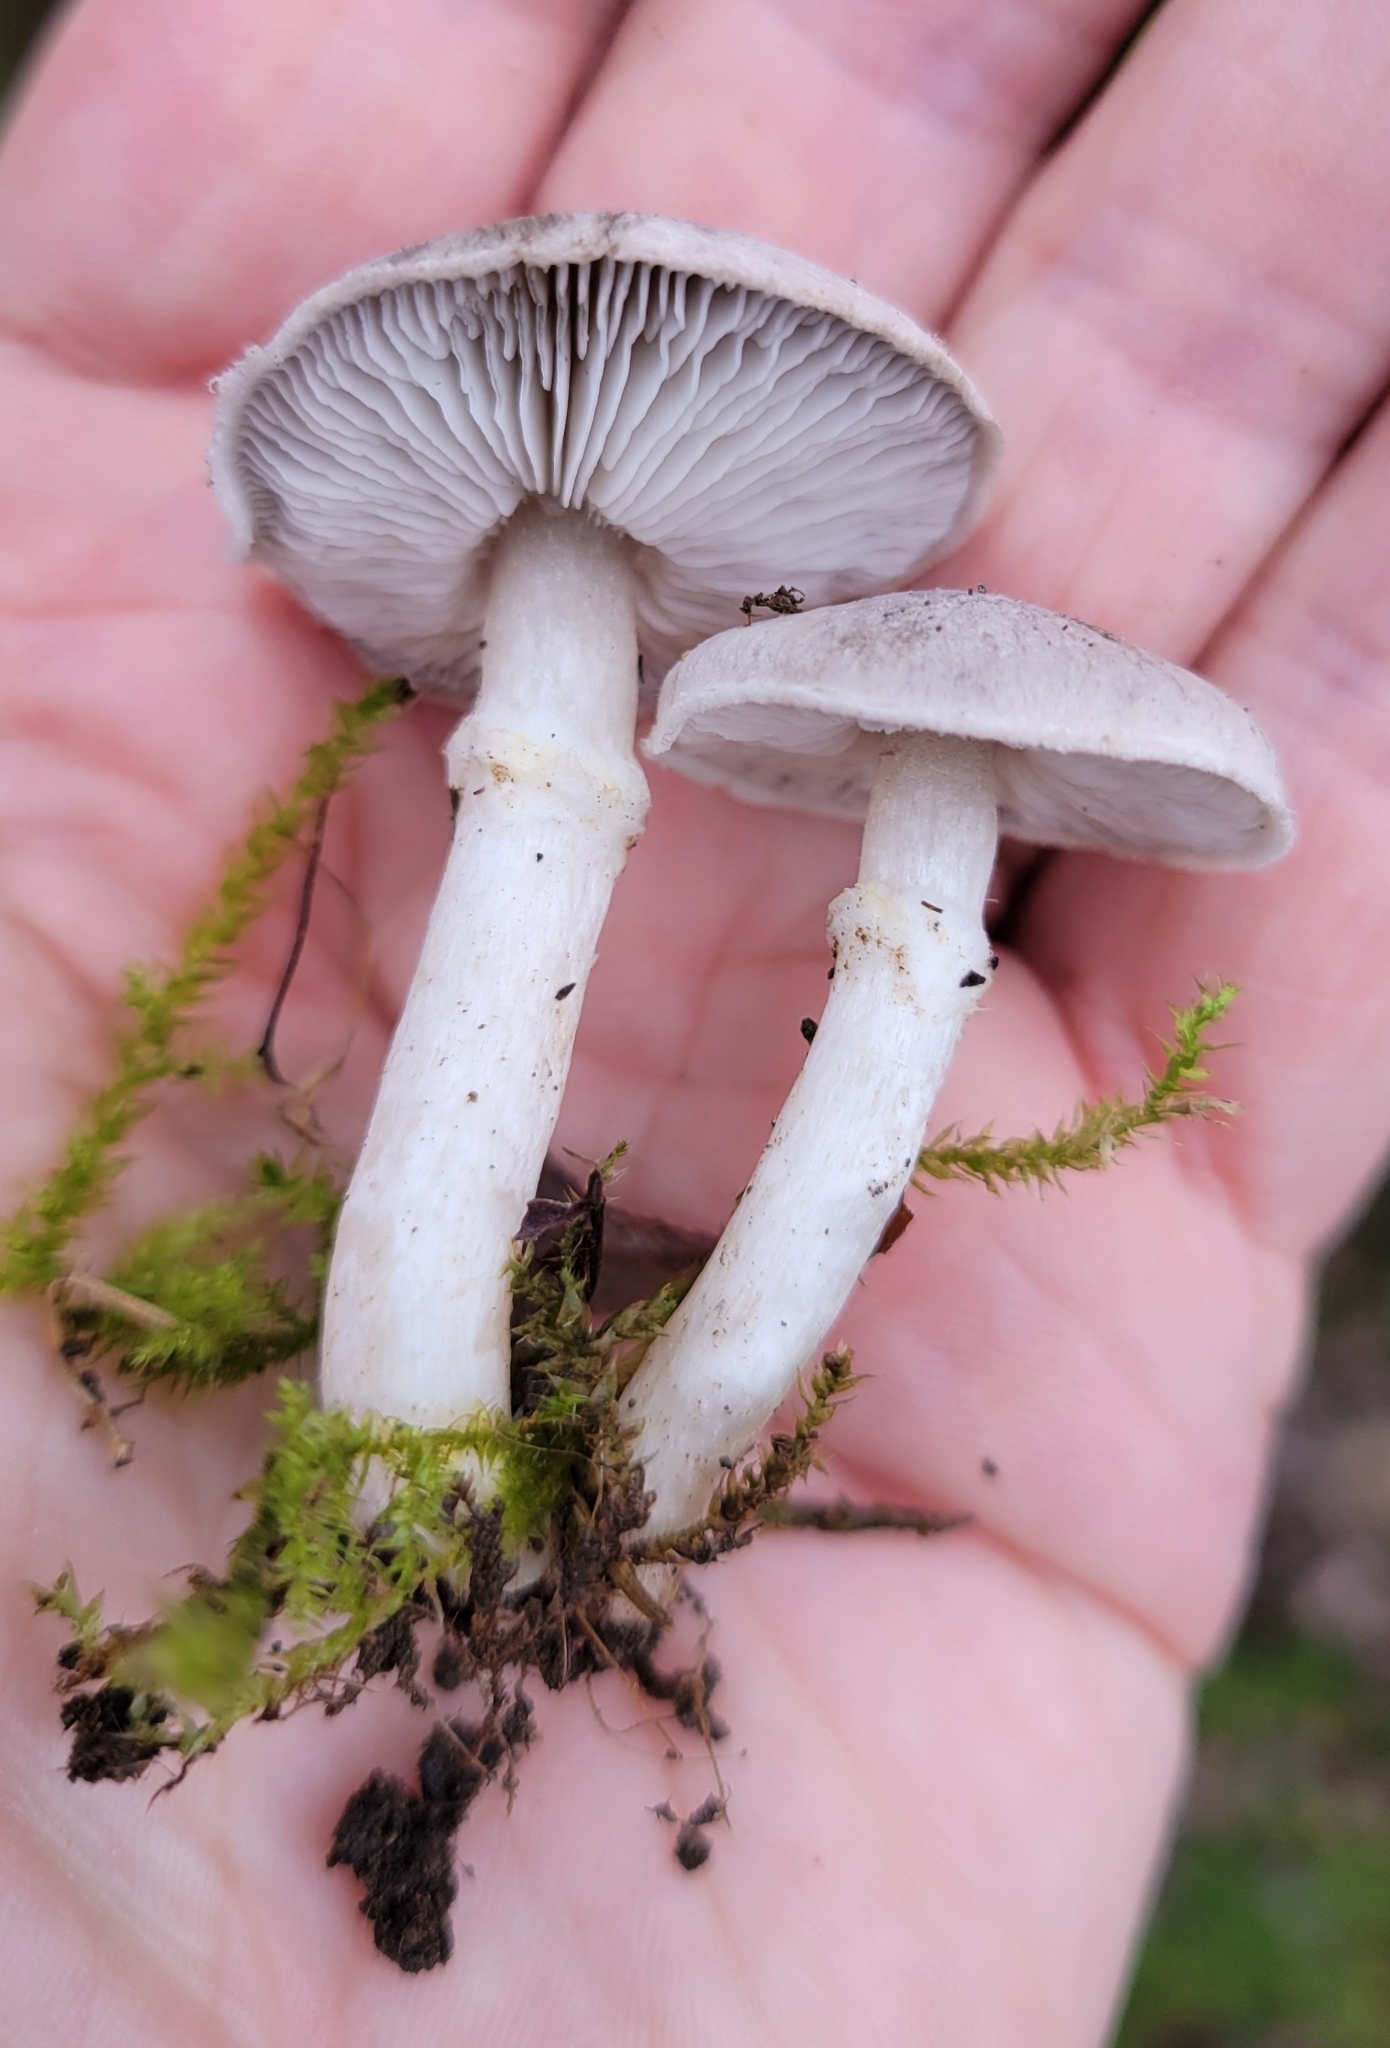
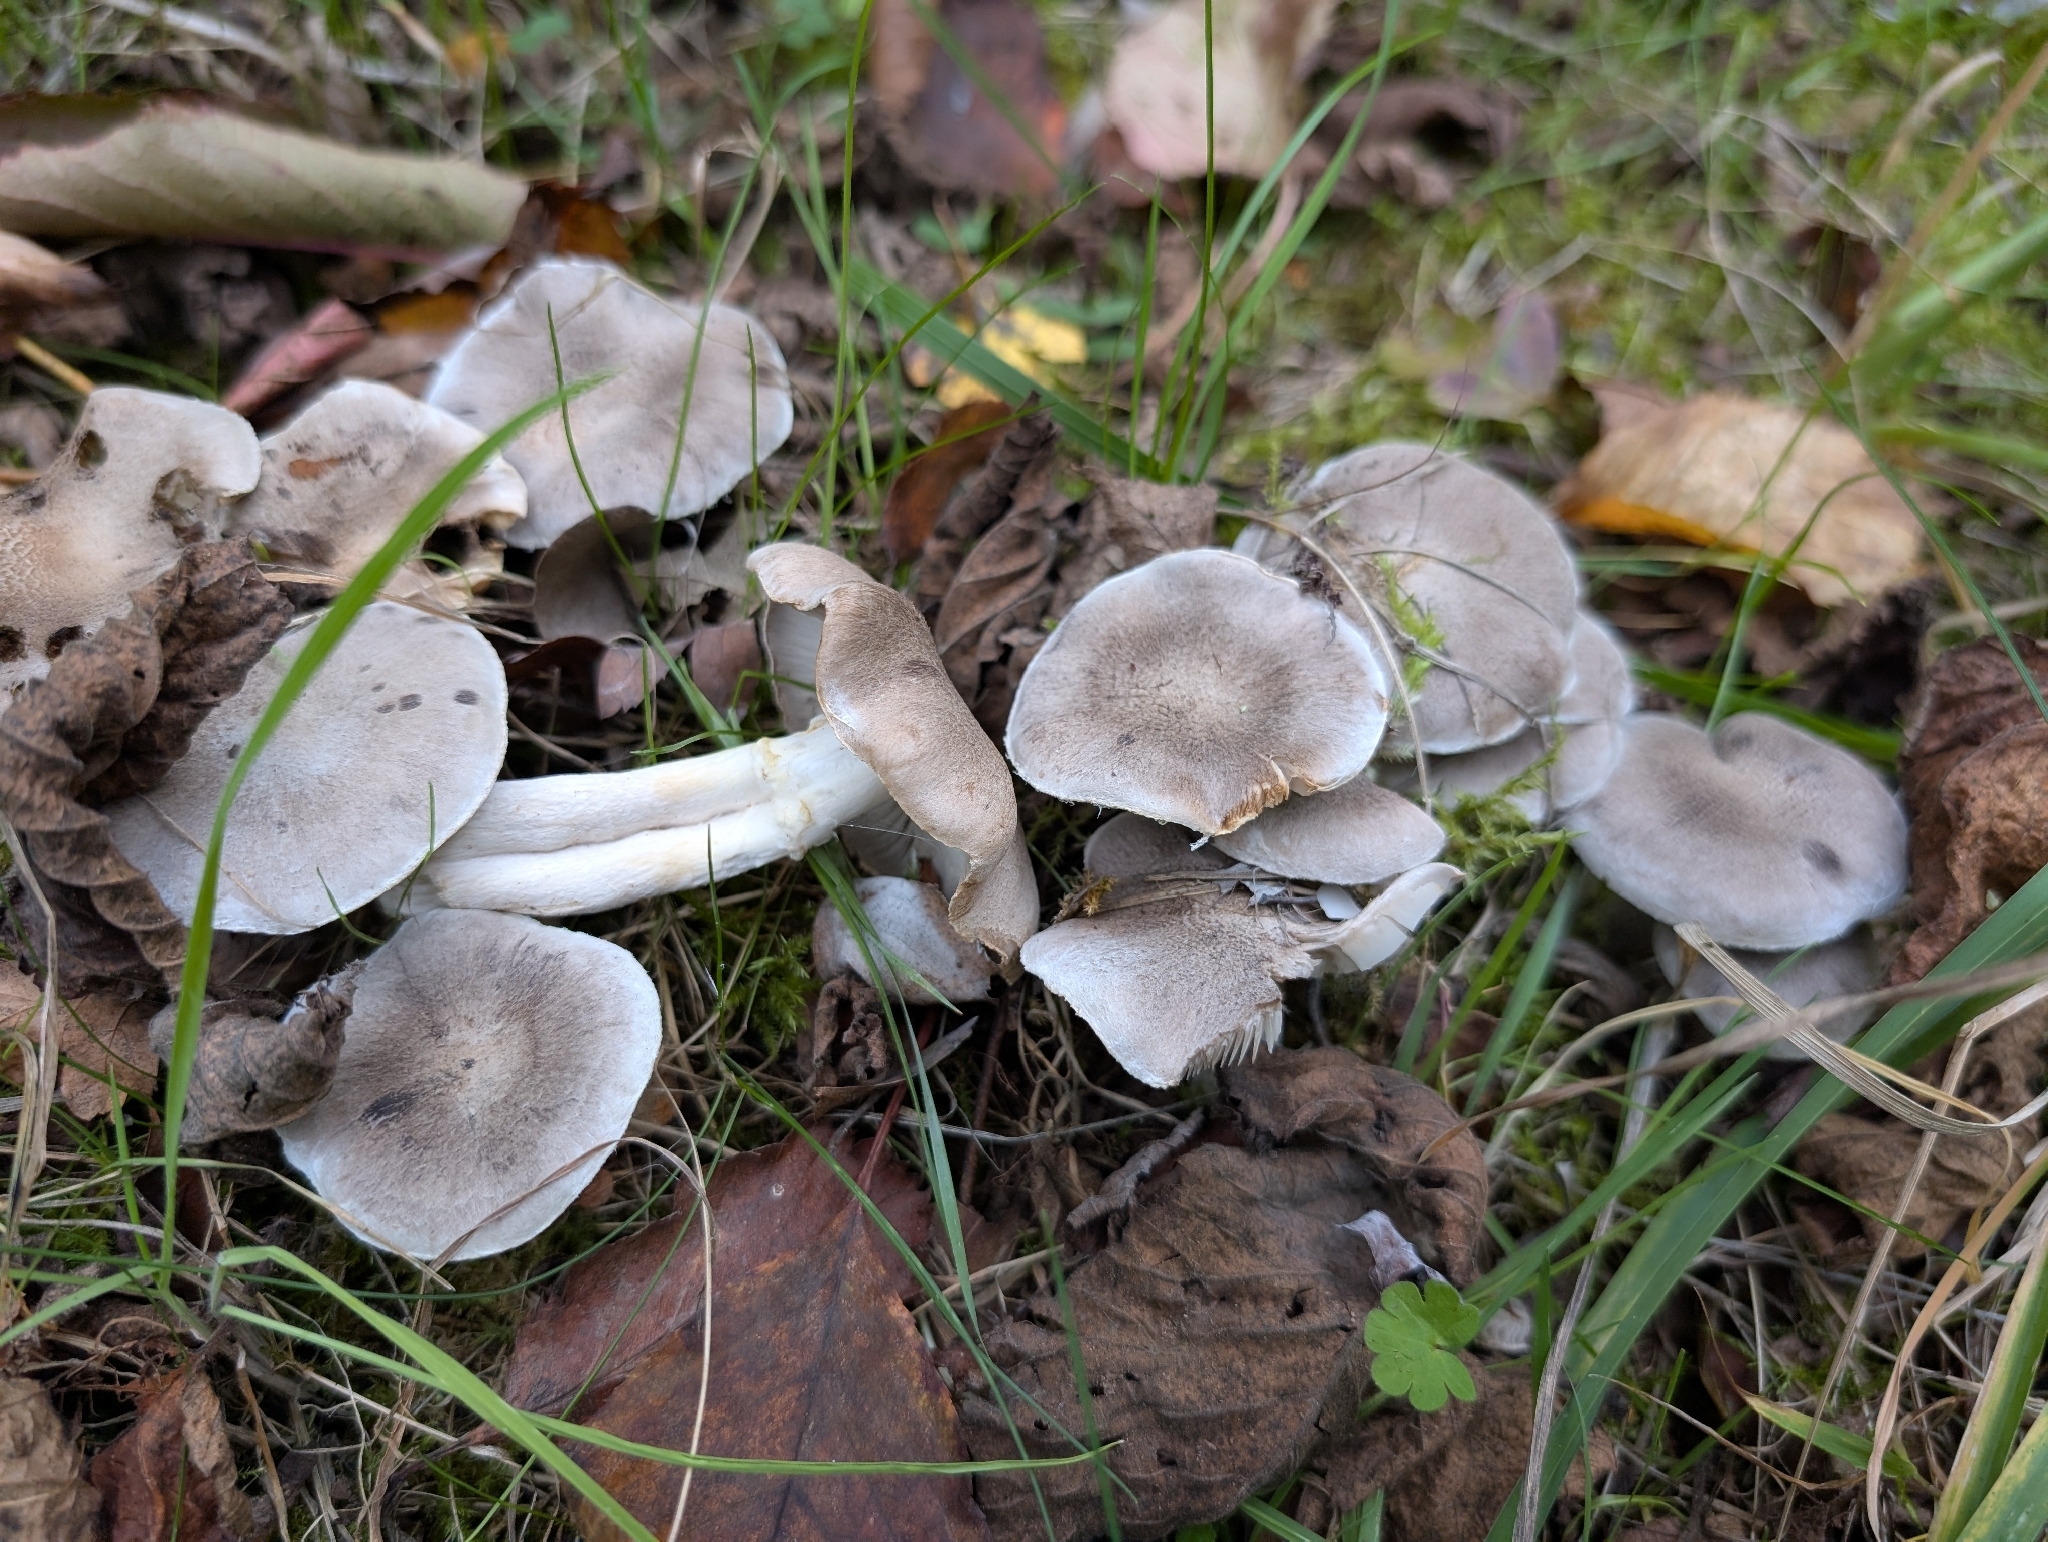


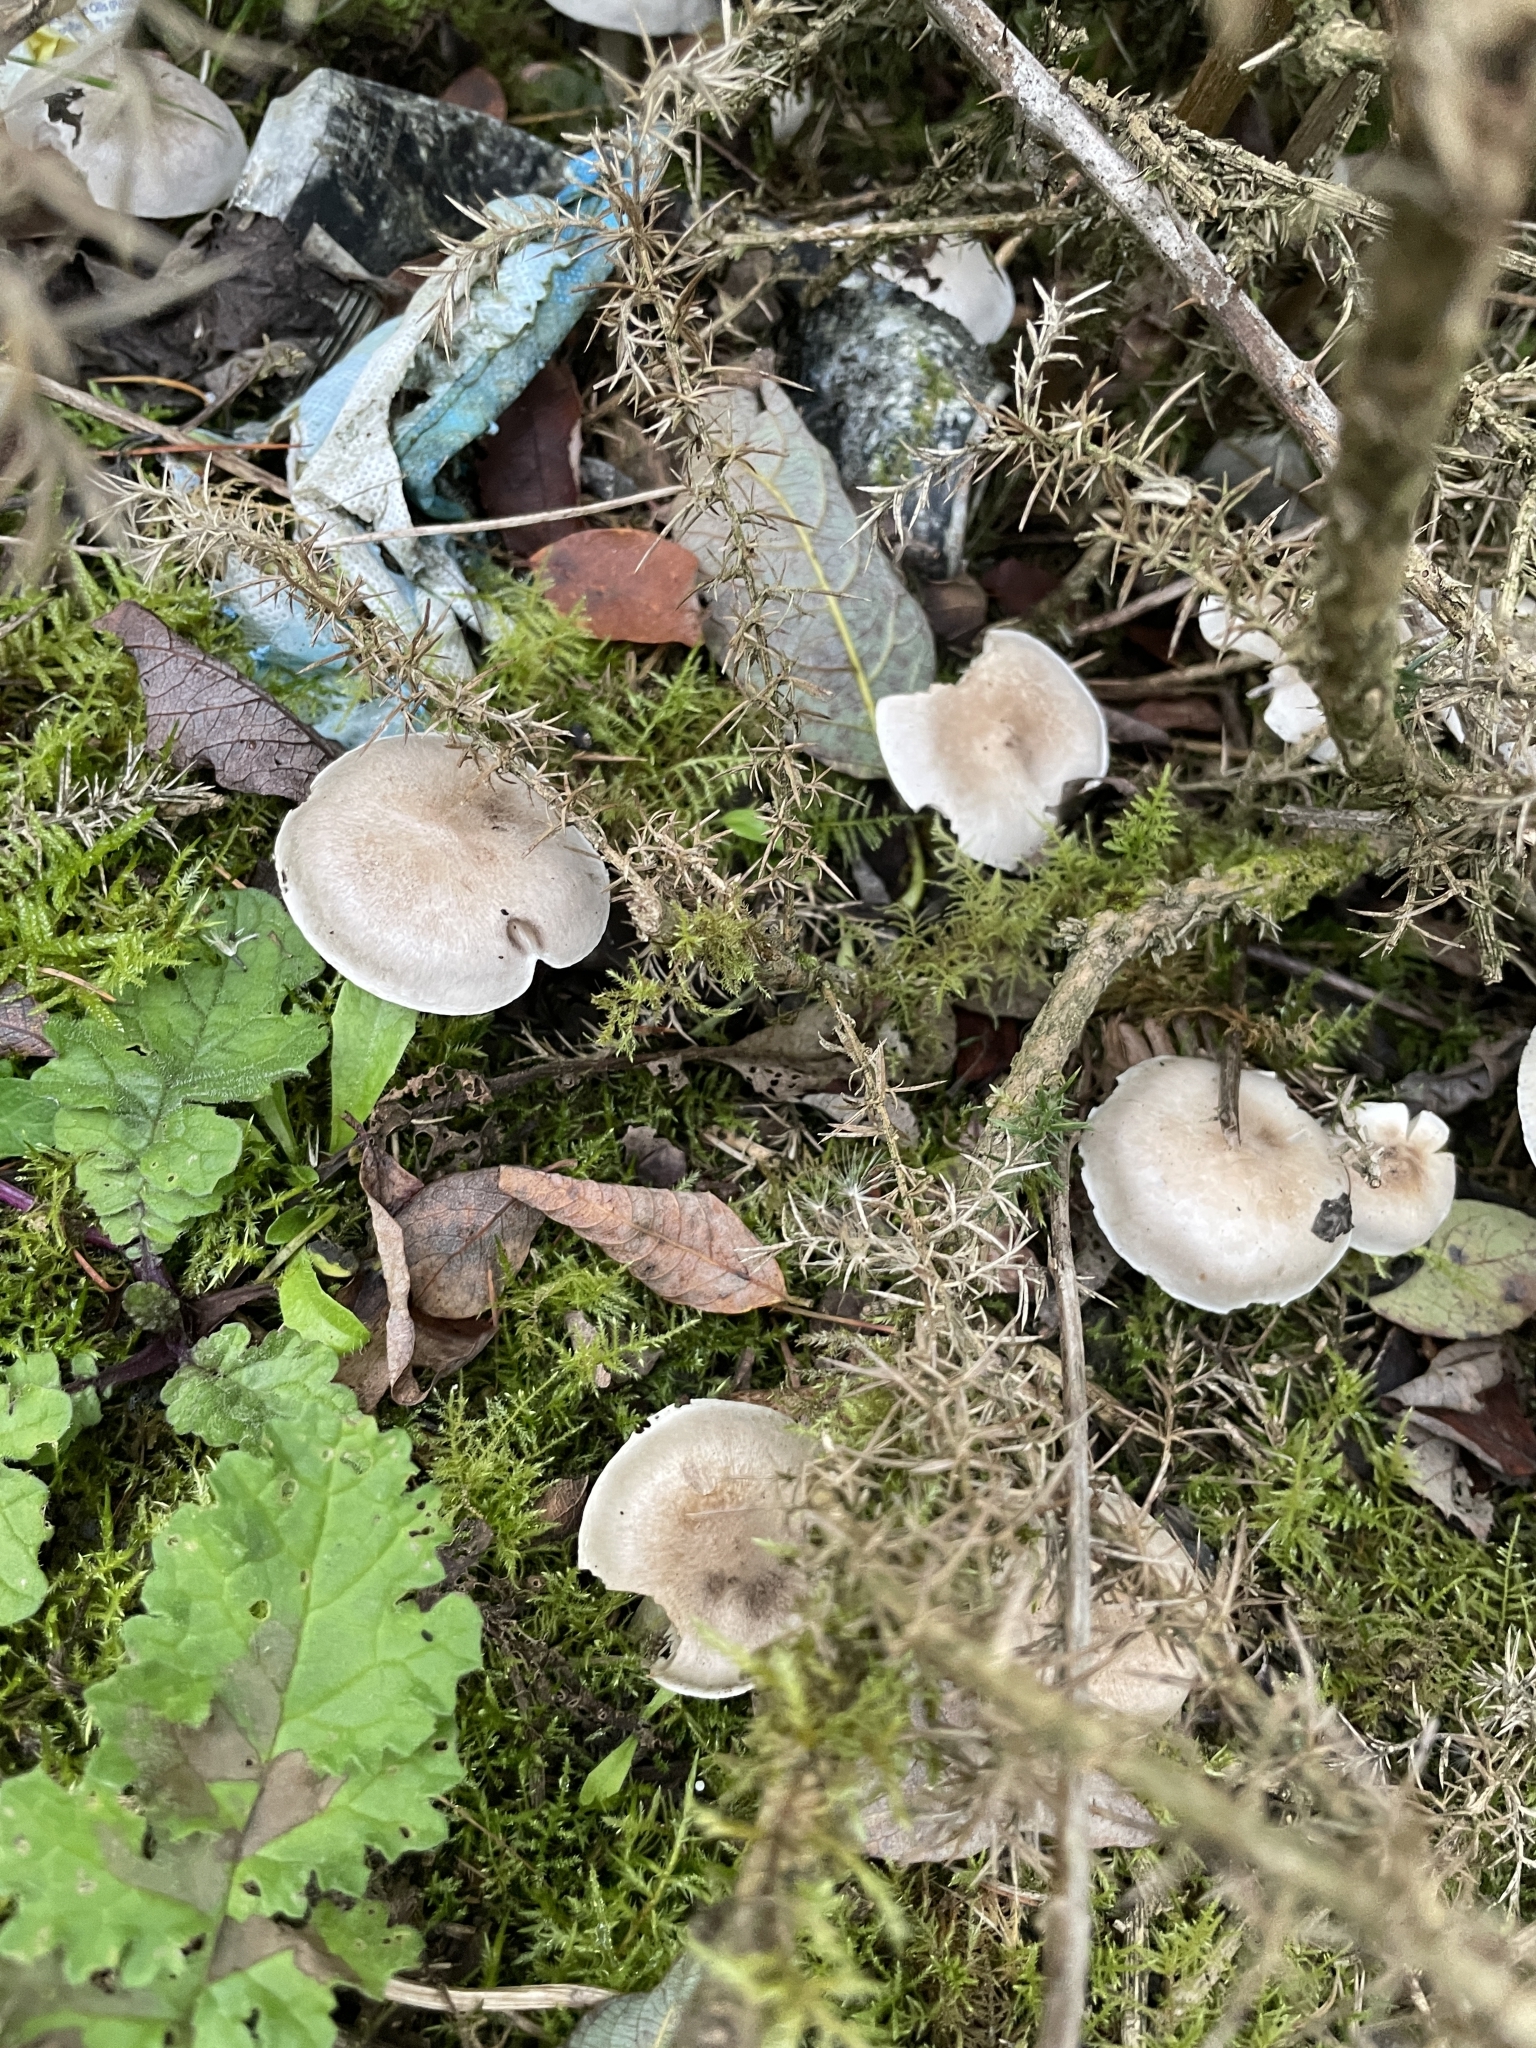
Gąska wierzbowa (Tricholoma cingulatum) to niewielki grzyb kapeluszowy z rodziny gąskowatych, wyróżniający się obecnością włóknistego pierścienia na trzonie. Gatunek tworzy mikoryzę wyłącznie z wierzbami, przez co spotykany jest na wilgotnych stanowiskach nadrzecznych, łęgowych i torfowiskowych. Jest grzybem jadalnym o mącznym zapachu, jednak rzadko zbieranym ze względu na niewielkie rozmiary owocników oraz małą popularność kulinarną. Występuje w strefie umiarkowanej Eurazji i Ameryki Północnej.
Rozpoznawanie, siedlisko i najważniejsze różnice.
Grzybiarz
Budowa owocnika
- Typ budowy
- Owocnik ma kapelusz i trzon.
Kapelusz
- Kształt
- Kapelusz może mieć kształt półkulisty, dzwonkowaty, płaski lub płaskowypukły.
- Powierzchnia
- Powierzchnia kapelusza jest sucha.
- Pokrycie
- Powierzchnia kapelusza może być filcowata; może mieć drobne, szarobrązowe lub oliwkowe łuseczki; może mieć brązowe lub szarobrązowe łuseczki.
- Połysk powierzchni
- Powierzchnia kapelusza jest matowa.
- Kolor
- Kapelusz może być szarawy, biały lub szarobrązowy; może być jasnoszary.
- Ułożenie brzegu
- Brzeg kapelusza może być podwinięty, a u młodych owocników może być zagięty do wewnątrz.
- Obrys brzegu
- Obrys brzegu jest falisty.
- Średnica
- Kapelusz może mieć średnicę od 30 do 60 milimetrów.
- Środek
- Niekiedy na środku kapelusza występuje tępy garbek.
- Osłona częściowa
- u młodych owocników: Biaława pajęczynowata osłona częściowa łączy brzeg kapelusza z trzonem.
Spód kapelusza
- Typ
- Hymenofor ma budowę blaszkową.
Blaszki przy trzonie
- Połączenie z trzonem
- Blaszki mogą być przyrośnięte do trzonu lub wolne od trzonu.
- Profil przy trzonie
- Blaszki są wycięte przy trzonie.
- Zbieganie hymenoforu po trzonie
- Blaszki zbiegają ząbkiem po trzonie.
- Naturalna barwa powierzchni blaszki
- Powierzchnia blaszki może być biaława, szara lub kremowa, a u dojrzałych owocników może być żółtawa.
- Rozstaw
- Blaszki mogą być średnio gęste lub blisko rozstawione.
- Szerokość
- Wysokość blaszek może wynosić od 2 do 4 milimetrów.
- Blaszeczki
- Stwierdzono obecność blaszeczek.
- Liczba szeregów długości blaszeczek
- Liczba szeregów długości blaszeczek może wynosić od 2 do 3.
Trzon i podstawa
- Kształt
- Trzon jest walcowaty.
- Kolor
- Trzon może być białawy, szarobrązowy lub biały.
- Pokrycie powierzchni
- Powierzchnia trzonu może być filcowata i włóknista. U góry może być kłaczkowata lub łuskowata.
- Wnętrze
- Trzon jest pełny.
- Długość
- Trzon może mieć długość od 30 do 80 milimetrów.
- Grubość
- Trzon może mieć grubość od 5 do 15 milimetrów.
Pierścień
- Obecność
- Pierścień występuje u tego gatunku.
- Budowa
- Pierścień jest watowaty.
- Położenie
- Pierścień jest położony w górnej części trzonu.
- Barwa
- Pierścień może być białawy lub biały.
Miąższ
- Barwa
- Miąższ może być białawy, biały lub kremowy.
- Twardość i zwartość
- Miąższ jest zwarty.
- Struktura
- W trzonie miąższ ma strukturę włóknistą.
- Zapach
- Zapach miąższu jest mączny; jest przyjemny.
- Grubość miąższu kapelusza
- Miąższ kapelusza może mieć grubość od 2 do 3 milimetrów.
- Nuty smakowe
- W smaku występuje nuta mączna.
Gdzie i kiedy rośnie
- Siedlisko
- Grzyb może występować w lasach, w tym iglastych, mieszanych lub liściastych, w siedlisku typu las łęgowy, na obrzeżach lasu, w zaroślach, w siedliskach ruderalnych i miejskich, na łąkach lub w sadach.
- Podłoże
- Bezpośrednim podłożem wzrostu może być gleba.
- Sposób wyrastania
- Owocniki mogą wyrastać w grupach, pojedynczo, w rozproszonych grupach lub kręgami.
- Częstość
- Owocnikowanie
- Potwierdzony zakres obserwacji obejmuje X–XII (dane z 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023 r.).
- Obszar występowania
- Potwierdzono występowanie w Polsce.
Jadalność i kuchnia
- Jadalność
- Jadalny
- Wymagana obróbka
- Wymaga obróbki
Prawo
- Ochrona
- W Polsce nie figuruje w wykazie gatunków grzybów objętych ochroną.
- Handel
- W Polsce nie figuruje w wykazie grzybów dopuszczonych do obrotu.
FAQ
Czy gąska wierzbowa jest grzybem jadalnym?
Tak, gąska wierzbowa jest grzybem jadalnym, jednak wymaga uprzedniej obróbki cieplnej. Ze względu na przeciętne walory smakowe i niewielkie rozmiary rzadko trafia do koszyków grzybiarzy.
Z jakimi drzewami współżyje gąska wierzbowa?
Gatunek ten tworzy mikoryzę wyłącznie z wierzbami (Salix), w tym z wierzbą szarą, białą, kruchą, iwą oraz wierzbą płożącą na wilgotnych stanowiskach.
W jakich miesiącach można znaleźć ten gatunek?
Owocniki pojawiają się od lipca do listopada, przy czym główny szczyt przypada na wrzesień i październik, aż do pierwszych mrozów. Wyjątkowo pojedyncze zbiory notowane są na początku grudnia.
Jak pachnie i smakuje gąska wierzbowa?
Zarówno zapach, jak i smak miąższu są wyraźnie mączne, co jest charakterystyczną cechą sensoryczną tego gatunku.
Czym wyróżnia się ten gatunek na tle innych gąsek?
Najbardziej charakterystyczną cechą anatomiczną tego gatunku jest obecność wyraźnej, włóknistej strefy pierścieniowej lub pierścienia na trzonie.
Czy gąskę wierzbową można spożywać na surowo?
Nie, surowe owocniki mogą wywołać zaburzenia żołądkowo-jelitowe. Grzyb ten bezwzględnie wymaga dokładnego ugotowania lub usmażenia przed spożyciem.
Gdzie najczęściej rośnie gąska wierzbowa?
Rośnie na glebach wilgotnych w łęgach nadrzecznych, nadrzecznych zaroślach, rowach melioracyjnych, obrzeżach torfowisk oraz wilgotnych zagłębieniach terenu.
Czy gąska wierzbowa jest objęta ochroną prawną w Polsce?
Nie podlega ścisłej ani częściowej ochronie gatunkowej w Polsce, lecz ze względu na specyficzne siedliska bywa lokalnie rzadka i cenna przyrodniczo.
Skąd pochodzi łacińska nazwa gatunkowa cingulatum?
Nazwa wywodzi się z łacińskiego słowa cingulum (pas, opaska) i nawiązuje bezpośrednio do pierścieniowatej strefy widocznej na trzonie grzyba.
Czy gąska wierzbowa ma zastosowanie w medycynie lub rzemiośle?
Nie, gatunek ten nie ma żadnych udokumentowanych zastosowań pozakulinarnych – nie był i nie jest używany w lecznictwie, rzemiośle ani barwiarstwie.
Miłośnik
Nazwy i historia
- Obowiązująca nazwa krajowa
- Gąska wierzbowa
- Obowiązująca nazwa taksonomiczna
- Tricholoma cingulatum
- Pozostałe nazwy
- gąska obuta
Obserwacje w domu
Wysyp zarodników
- Potrzebne materiały
- świeży, dojrzały kapelusz, kartka papieru, szklanka lub miseczka, woda
- Czas
- 2–24 h
- Wykonanie
- Połóż kapelusz spodem na papierze.
- Dodaj kroplę wody na wierzch i przykryj.
- Po 2–24 godzinach podnieś kapelusz i obejrzyj osad.
Czego szukać
- Barwa wysypu
- Wysyp zarodników jest biały.
Pod mikroskopem
- Potrzebne materiały
- mikroskop świetlny, szkiełko podstawowe i nakrywkowe, igła, woda, zarodniki z wysypu
- Wykonanie
- Przenieś igłą odrobinę wysypu na szkiełko.
- Dodaj kroplę wody, przykryj szkiełkiem i obejrzyj zarodniki.
Czego szukać
- Kształt zarodnika
- Zarodnik może mieć kształt elipsoidalny, wydłużony elipsoidalny, szeroko elipsoidalny lub cylindryczny.
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką.
- Wymiary
- Zarodnik może mieć długość od 4 do 7,2 mikrometra i szerokość od 2,5 do 4,2 mikrometra.
- Średnie wymiary zarodnika — materiał 1
- Średnia długość: 5,2 mikrometra; średnia szerokość: 3,1 mikrometra.
Wymiary porównuj po skalibrowaniu skali mikroskopu.
Ekologia i rozmieszczenie
- Partnerzy mikoryzowi
- Mikoryzę z tym grzybem tworzy Salix repens.
- Sposób odżywiania
- Gatunek ma sposób odżywiania ektomikoryzowy.
Zastosowania pozakulinarne
Gąska wierzbowa (Tricholoma cingulatum) nie ma żadnych udokumentowanych zastosowań pozakulinarnych, zarówno historycznych, jak i współczesnych. W tradycji ludowej oraz źródłach etnomicologicznych brak jest świadectw jej praktycznego wykorzystania przez człowieka poza sferą spożywczą.
W odniesieniu do poszczególnych dziedzin użytkowych:
- Rzemiosło barwierskie: gatunek nie był dawniej i nie jest obecnie stosowany do farbowania wełny ani innych tekstyliów.
- Zastosowania opatrunkowe i gospodarcze: brak tradycji używania owocników do tamowania krwi, opatrywania ran, wyrobu hubki czy rozpałki.
- Praktyki rytualne i kultowe: gatunek nie występował w obrzędach, magii ludowej ani praktykach szamańskich.
- Współczesne rękodzieło: brak jakiegokolwiek wykorzystania w nowoczesnym rzemiośle użytkowym, florystyce czy innych gałęziach pozakonsumpcyjnych.
Historia i kultura
W tradycyjnej kulturze ludowej, folklorze i wierzeniach europejskich gąska wierzbowa nie zapisała się jako samodzielny, wyodrębniony podmiot. W dawnych tradycjach słowiańskich i germańskich drobne grzyby blaszkowe rosnące w podmokłych zaroślach traktowano zbiorczo i obojętnie, zaliczając je do kategorii grzybów bezużytecznych, nie nadając im osobnych nazw ludowych, znaczeń symbolicznych ani ról w obrzędowości czy mitologii. Gatunek nie pojawia się również w literaturze pięknej ani w dawnej ikonografii.
Świadectwa obecności gąski wierzbowej w europejskim dorobku kulturowym wiążą się ściśle z historią nowożytnej mykologii i systematyki przyrodniczej. Gatunek został naukowo opisany w 1830 roku pod nazwą Agaricus cingulatus (Almfelt ex Fr., opublikowaną w „Linnaea”), natomiast współczesną kombinację Tricholoma cingulatum nadał mu w 1892 roku Jacobasch na łamach „Verhandlungen des Botanischen Vereins der Provinz Brandenburg”. Nazwa gatunkowa wywodzi się z łacińskiego słowa cingulum, oznaczającego pas lub opaskę, co stanowi bezpośrednie odniesienie do strefy pierścieniowej na trzonie – cechy wyjątkowej w rodzaju Tricholoma. W późniejszym piśmiennictwie mykologicznym grzyb ten stanowił ważny punkt odniesienia w klasyfikacji rodzaju gąska.
Jadalność i bezpieczeństwo
Gąska wierzbowa (Tricholoma cingulatum) jest grzybem jadalnym o niskiej lub przeciętnej wartości stołowej ze względu na niewielkie rozmiary, cienki miąższ oraz podatność na nasiąkanie wodą w wilgotnym otoczeniu. Cechuje się wyraźnym mącznym smakiem i aromatem, który dla części grzybiarzy stanowi zaletę, natomiast dla innych jest cechą niepożądaną.
Ryzyko właściwe dla tego gatunku wiąże się przede wszystkim ze spożyciem owocników surowych lub niedogotowanych, co wywołuje ostre dolegliwości układu pokarmowego, takie jak bóle brzucha i nudności, spowodowane obecnością termolabilnych substancji drażniących. Dodatkowe ryzyko gatunkowe wynika z możliwości zatarcia lub odpadnięcia delikatnej strefy pierścieniowej na trzonie u starszych okazów, co utrudnia prawidłowe rozpoznanie taksonomiczne.
Podstawowym warunkiem bezpiecznego spożycia jest wykluczenie owocników surowych oraz poddanie ich dokładnej obróbce termicznej – długiemu gotowaniu lub smażeniu – z zalecanym odlaniem pierwszej wody po obgotowaniu, co neutralizuje związki niestrawne.
Tradycje konsumpcyjne wykazują wyraźne różnice regionalne:
- W Polsce i Europie Środkowej gatunek jest pozyskiwany incydentalnie i pozostaje kulinarnie niemal nieznany.
- W Europie Wschodniej bywa tradycyjnie kwaszony lub solony po uprzednim obgotowaniu.
- W Europie Zachodniej uchodzi powszechnie za grzyb bezwartościowy i jest ignorowany w celach spożywczych.
Siedlisko i występowanie
Gąska wierzbowa jest gatunkiem ściśle powiązanym z drzewami i krzewami z rodzaju wierzba (Salix). Rośnie na glebach wilgotnych, piaszczysto-gliniastych, aluwialnych oraz torfowych, zazwyczaj o odczynie od obojętnego do lekko zasadowego lub umiarkowanie kwaśnego. Najczęściej występuje w nadrzecznych łęgach wierzbowo-topolowych, zaroślach nadrzecznych, wilgotnych obniżeniach terenu, rowach melioracyjnych, na obrzeżach stawów i jezior, a także na wilgotnych łąkach, torfowiskach niskich i w strefach wydm nadmorskich porośniętych wierzbą płożącą (Salix repens).
Zasięg geograficzny gatunku obejmuje przede wszystkim strefę umiarkowaną i borealną Europy oraz Azji, a także wybrane rejony Ameryki Północnej. W Europie Północnej i Środkowej jest szeroko rozprzestrzeniony, choć ma charakter lokalny i wyspowy, uzależniony od obecności odpowiednich fitocenoz wierzbowych. W wielu krajach Europy Zachodniej i Południowej notowany jest rzadziej i bywa ujmowany na regionalnych czerwonych listach grzybów zagrożonych.
Sezon owocnikowania przypada na późne lato oraz jesień. Owocniki pojawiają się zazwyczaj od sierpnia do listopada, z wyraźnym szczytem przypadającym na wrzesień i październik. W chłodniejszych rejonach północnych oraz na obszarach górskich pojaw może zakończyć się już w październiku wraz z pierwszymi przymrozkami, natomiast w rejonach o łagodniejszym klimacie atlantyckim owocniki bywają spotykane jeszcze w grudniu.
Źródła
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Badacz
Jadalność i kuchnia
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jadalność
- Jadalny — źródło oznaczenia
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Kuchyňskévyužití:Vatlasechbýváoznačovánajakojedlá;aktualnezastrzeżeniegrupowezachowanewBadaczu.
- Wymagana obróbka
- Wymaga obróbki
FAQ gatunku: obróbka termiczna · literal_statements/0 i/1: wymóg obróbki termicznej w FAQ. Jest to zapis treści redakcyjnej, nie wynik doświadczenia toksykologicznego.
Nazwy naukowe i taksonomia
- Obowiązująca nazwa naukowa
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[28] [31]
Ekologia i rozmieszczenie
- Częstość — ocena i zakres źródła
- Holandia: Gatunek jest pospolity. [17]
Diagnostyka laboratoryjna
Dane ustrukturyzowane
Podstawki
Cystydy hymenialne
Pozostałe cechy laboratoryjne
- Długość
- Długość komórek tramy blaszek może wynosić od 35 do 150 mikrometrów. [8]
- Kształt
- Komórki tramy blaszek mają kształt maczugowaty lub walcowaty. [8]
- Grubość ściany
- Grubość ścian komórek tramy blaszek wynosi około 1 mikrometra. [8]
Grubość ściany strzępek skórki kapelusza może wynosić w przybliżeniu od 0,5 do 1 mikrometra. [8] - Grubość ściany — ocena jakościowa
- Komórki tramy blaszek są cienkościenne. [8]
Komórki tramy blaszek są nieznacznie grubościenne. [8]
Podstawki: Badana komórka może być cienkościenna. [32] - Szerokość
- Szerokość komórek tramy blaszek może wynosić od 15 do 25 mikrometrów. [8]
Strzępki podhymenium mogą osiągać szerokość od 2 do 4 mikrometrów. [8] - Budowa subhymenium
- Subhymenium ma budowę nitkowatą. [8]
Skórka kapelusza
- Wygląd optyczny strzępek skórki
- Strzępki skórki kapelusza są hialinowe. [8]
- Układ strzępek skórki
- Strzępki skórki kapelusza mogą być promieniste lub przeplecione. [8]
- Długość elementów skórki kapelusza
- Element skórki kapelusza może mieć długość od 50 do 180 mikrometrów. [32]
- Barwa strzępek skórki kapelusza
- Strzępki skórki kapelusza mogą być żółtobrązowe lub brązowawe. [8]
Reakcje z odczynnikami
- Reakcja amyloidalna
- Reakcja amyloidalna zarodników w odczynniku Melzera jest ujemna. [8]
Zarodniki
- Średni iloraz długości i szerokości zarodnika
- Średni iloraz długości i szerokości zarodnika wynosi 1,7 (odchylenie standardowe: 0,15). [8]
- Obecność wyrostka wnęki bazydiospory
- Wyrostek wnęki bazydiospory jest stosunkowo duży. [8]
- Barwa zarodnika w mikroskopie
- Zarodnik w obrazie mikroskopowym jest hialinowy, bezbarwny i przejrzysty. [5] [8]
- Iloraz długości i szerokości zarodnika
- Iloraz długości i szerokości zarodnika może wynosić od 1,25 do 2. [8] [32]
- Kształt zarodnika
- Zarodnik może mieć kształt elipsoidalny, wydłużony elipsoidalny, szeroko elipsoidalny lub cylindryczny. [5] [32] [8]
- Powierzchnia zarodnika
- W obserwacjach mikroskopowych powierzchnię zarodnika opisywano jako gładką. [5] [8]
- Grubość ściany zarodnika
- Zarodnik jest cienkościenny. [8]
Trama hymenoforu
Materiał i metody badań
Dane mikroskopowe — źródło i ograniczenia
Materiał: Próba [61/3/2]: 61 zarodników z 3 owocników i 2 kolekcji. Zbioru pomiarowego nie utożsamiono z całym wykazem okazów badanych w publikacji.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Ograniczenia: Średnia i odchylenie próbki nie są granicami pojedynczego Q.
[8]- Wyniki źródłowe — Liczba zarodników na jednej podstawce
- Liczba zarodników na jednej podstawce wynosi 4. [32] [8]
- Wyniki źródłowe — Szerokość strzępek tramy
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [32]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Wyniki źródłowe — Długość zarodnika
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [32] - Wyniki źródłowe — Szerokość zarodnika
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [32]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [32]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [32]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [32]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [32]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [32]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [32]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [32]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [32]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [32]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [32]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [32]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [32]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [32]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [32]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [32]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [32]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [32]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
[5] [32] [8] [29]Materiał i metody
Indie: Mehmood i in. (2022) opisali dwa zbiory z Bhimbat w Drass, 19 i 20 sierpnia 2021 r., TMKVYPS21-39 i 21-43. Podali n = 20 zarodników, bez jednoznacznego rozdzielenia próby między kolekcje. Sekcje badano w 5% KOH i 1% czerwieni Kongo. Trójczłonowe zapisy wymiarów i Q zachowano w źródle; wobec braku definicji środkowej statystyki nie podpisano jej arbitralnie jako średniej. Sekwencja OM977115 z 21-39 wykazała 100% podobieństwa do MW628104. W tekście metody wskazują MEGA-X, a podpis ryciny MEGA6.0; rozbieżność pozostaje przy badaniu.
Chiny: Cui i in. (2026), sekcja 74: próba [61/3/2] oznacza 61 zarodników z 3 owocników i 2 kolekcji. Co najmniej 90% pomiarów długości mieści się w 4,5–6 µm, a pełne krańce to 4–6,5 µm; szerokość ma pełne krańce 2,5–4 µm. Qm 1,7 ± 0,15 jest średnią z odchyleniem standardowym próby. Preparaty montowano w 5% KOH, czerwień Kongo stosowano w razie potrzeby, a amyloidalność sprawdzano odczynnikiem Melzera. Dla innych struktur podano także kontrast fazowy 1000×. Nie przypisano temu gatunkowi domyślnie SEM. Ryc. 93 pochodzi z HKAS106635 i nie identyfikuje samodzielnie całej próby.
Północna Europa: Heilmann-Clausen i in. (2017) podają w ogólnej metodzie co najmniej 20 losowo wybranych zarodników na kolekcję i preparaty w 2% KOH lub 5–10% NH3. Nie przypisano temu gatunkowi arbitralnie n = 20 ani obu mediów jednocześnie. Tabela 1 wiąże nazwane zbiory ze Słowacji, Danii i Holandii z numerami okazów i sekwencji; same lata oraz kody kolekcji nie wyznaczają miesięcy owocnikowania.
[32] [8] [30]Odczytane stanowiska
Polska: Pełna karta grzyby.pl zawiera 15 datowanych wpisów GRej, w tym powtórne potwierdzenia stanowisk. Są to lokalne obserwacje od 2006 do 2023 r., nie ocena liczebności całej Polski. Wybrane daty obejmują październik, listopad i 6 grudnia 2020 r. pod Dębogórą. Wojewoda (2003), wpis T. cingulatum, opisuje zbiór z Cmentarza Batowickiego w Krakowie z 1998 r. i podaje październik; pod T. ramentaceum przytacza historyczny zapis z Puszczy Bukowej, ze Szczecina i okolicy. Nie przeniesiono dat publikacji na daty zbioru. Województwa i dokładne stanowiska bez pasującego wspólnego identyfikatora pozostają w zachowanym odczycie.
Zakres zagraniczny: W analizie z 2017 r. są zbiory MC03-252 z Havešovej na Słowacji, duński neotyp MC96-134, inny duński zbiór MC96-170 z Borum i holenderski MEN95210 z Boekweitveentje w Drenthe. Materiał chiński obejmuje Sichuan (Kangding/Gonggashan, 2700 m; Pingwu, 2500 m) i Yunnan (Shangri-La/Wongshui, 3400 m). Artykuł indyjski wymienia także kraje europejskie na podstawie starszych opracowań; nie odczytano automatycznie całych przywołanych książek i nie uznano tej listy za aktualny pełny zasięg.
[29] [33] [38] [30] [8] [32]Dowód mikoryzy z wierzbą
Badany korzeń: Leake i in. (2004) opisali ektomikoryzowe końcówki korzeni wierzby płożącej Salix repens w Newborough Warren. Badano trzy grupy próbek korzeni; autorzy widzieli płaszcze mikoryzowe i połączenia ryzomorfów, a próbki miały profil ITS-RFLP typu I zgodny z badanym symbiontem Monotropa. To dowód wykraczający poza samo sąsiedztwo drzew. Tabela 5 podaje dla tych trzech prób Salix „nd” dla mtLSU i regionu ITS, więc nie oznacza to trzech niezależnie sekwencjonowanych prób. Gatunek wspólnego typu ustalano na podstawie sekwencji reprezentatywnych i porównania z owocnikami.
Zakres partnera: Ten bezpośredni dowód dotyczy Salix repens. Wpis dotyczący Salix caprea w Millers Dale opisuje Monotropa rosnącą pod wierzbą i nie przedstawia osobnej analizy korzeni tej wierzby. W danych zapisano dostępny rodzaj Salix; dokładna nazwa wierzby płożącej pozostaje przy badaniu. Nie potwierdzono tą metodą wszystkich gatunków wierzb ani innych drzew wymienianych w opisach siedlisk.
[34]Przesiewowe badanie ekstraktów
Materiał 46/07: Otto (2017), dodatek A3, odnotowuje materiał T. cingulatum 46/07 oznaczony „fr”. Dla ekstraktów metanolowego i octanu etylu tabela podaje brak zahamowania w trzech testach oznaczonych SEPTTR, PHYTIN i CLADCU. W kolumnie BOTRCI jest „n.t.” — nie badano; tego wpisu nie zamieniono na wynik ujemny. To jakościowe wyniki konkretnego materiału i testów, bez wniosku o zastosowaniu użytkowym lub leczniczym gatunku.
Granice danych: Z odczytanego wyciągu nie ustalono stężeń, liczby powtórzeń, liczbowego punktu końcowego ani numeru okazu zielnikowego i miejsca zbioru. Nie rozszyfrowano automatycznie wszystkich kodów organizmów testowych. Bezpośredni adres repozytorium zwrócił stronę HTML zamiast PDF; zachowany odczyt tabeli nie jest deklaracją przeczytania całej rozprawy. Wyników nie przeniesiono na gotowane owocniki, bezpieczeństwo żywności ani skuteczność kliniczną.
[37]Skład materiału z Kargil — zakres badania
Materiał i powtórzenia: Mayirnao i in. (2025) zebrali dojrzałe owocniki w Drass w rejonie Kargil we wrześniu 2022 r., na wysokości 3276 m n.p.m. Rozdzielono profil metabolitów GC–MS, oznaczenia suchej masy i stosunki molowe. Trzy powtórzenia oznaczeń nie wyznaczają liczby niezależnych owocników. Szczegółowe protokoły oraz identyfikację molekularną autorzy odsyłają do suplementu; suplement nie został odczytany.
Znaczenie procentów: Tabela 1 podaje procent składu profilu metabolitów GC–MS. Nie jest to procent masowy składnika w owocniku. Zachowano każdy odczyt kolumny T. cingulatum oraz źródłowe SD. Osobno pozostają wyniki niewykrycia: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Niewykrycie daną metodą nie oznacza bezwzględnej nieobecności substancji. Kwas hydroksyglutarowy występuje w tabeli w dwóch różnych wierszach; nie scalono odmiennego zapisu ilościowego i niewykrycia.
Testy przeciwutleniające: W sekcji 3.10 autorzy podali dla T. cingulatum IC50 = 9,03 mg/ml w teście wychwytywania nadtlenku wodoru oraz 5,52 mg/ml w teście redukcji żelazicyjanku potasu. Są to wyniki testów, nie potwierdzenie leczenia, suplementacji ani bezpieczeństwa spożycia. Główny tekst nie rozstrzyga wszystkich szczegółów protokołu testów; nie zastąpiono ich testem DPPH ani innym punktem końcowym. W abstrakcie wyróżniono redukującą aktywność V. bombycina, mimo niższej wartości podanej dla T. cingulatum w sekcji wyników.
[35]Weryfikacja występowania — zakres i ograniczenia
Materiał: Dokładny zapis źródłowy dla BG
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 10.11.2026.
Ograniczenia: Zakres wynika z podanego źródła; bez rozszerzania na inne obszary lub okresy.
[14]Zakres opracowania
Przed ukończeniem rekord wymaga uzupełnienia lub rozliczenia.
- Nowe źródła wymagają rozliczenia informacji napotkanych podczas przeglądu.
Podstawa prawna i zakres oceny
Przepisy dla lokalizacji: Polska
Podstawa informacji o ochronie
Gatunek nie jest wymieniony w załącznikach rozporządzenia o ochronie gatunkowej grzybów (Dz.U.2014/1408).
[1]Podstawa informacji o handlu
Gatunek nie jest wymieniony w wykazie dopuszczenia do obrotu lub produkcji przetworów grzybowych (Dz.U.2026/258, załącznik1); nie jest to klasyfikacja jadalności.
[2]Wyniki analityczne
Odrębne źródłowe wyniki analityczne
- Izoleucyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,59 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,14 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Leucyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,44 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,08 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Lizyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,65 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,04 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Fenyloalanina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,58 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,15 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Treonina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 2,22 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,45 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Walina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,12 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,09 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Alanina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 2,64 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,59 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Asparagina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,14 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,01 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas asparaginowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,26 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,07 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas glutaminowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,98 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,35 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Glicyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 2,11 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,78 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Prolina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,59 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,28 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Seryna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,0 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,14 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Acetylolizyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,21 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,03 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Ergotioneina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,16 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,03 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Glicyloprolina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,81 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,16 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- 5-oksoprolina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 7,95 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,04 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Adenozyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,27 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,1 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Etanoloamina — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,36 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,28 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Metyloadenozyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,19 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,01 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Uracyl — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,59 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,22 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Mocznik — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,88 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,12 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Urydyna — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,04 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,17 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Deoksygalaktoza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,04 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,01 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Erytroza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,2 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,05 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Fruktoza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,55 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,41 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Fruktopiranoza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,42 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,06 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Taloza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,86 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,06 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Trehaloza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 18,67 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,69 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Ksyluloza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,25 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,08 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- α-mannobioza — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,28 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,01 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas deoksytetronowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,22 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,04 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas glukonowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,55 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,26 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas glicerynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,62 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,23 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas hydroksyglutarowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,29 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,1 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas rybonowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,19 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,06 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas ksylonowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,52 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,11 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Erytrytol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,28 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,37 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Glucitol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 10,33 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 2,42 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Glicerol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 5,71 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,45 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Mezoerytrytol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,05 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,03 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Mioinozytol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,05 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,2 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Rybitol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 2,36 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,18 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas mirystynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,65 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,03 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas palmitynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 3,7 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,66 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas stearynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,8 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,41 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas oleinowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 6,05 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,5 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas palmitoelaidynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,22 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,11 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Monooleoiloglicerol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,47 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,14 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Monopalmitynian glicerolu — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,39 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,11 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas linolowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 5,3 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,08 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas azelainowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,12 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,34 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Stigmasterol — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,11 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,0 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas cytrynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,77 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,47 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas etylomalonowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,29 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,11 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas fumarowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,15 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,13 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas hydroksymalonowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,34 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,04 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas maleinowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 4,31 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,64 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas metylomaleinowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,07 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,02 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas metylobursztynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,23 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,04 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas pirogronowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,22 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,001 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas szczawiowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,15 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,06 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas szikimowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,37 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,1 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas bursztynowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 1,0 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,17 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Kwas fosforowy — udział w profilu GC–MS
- Wynik oznaczenia wynosi 0,6 % profilu GC–MS. Podstawa masy nie została podana w źródle. Niepewność: 0,1 % profilu GC–MS (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: GC–MS po derywatyzacji MSTFA; procent składu profilu metabolitów według tabeli 1.[35] [36]
- Azot
- Wynik oznaczenia wynosi 12,84 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,35 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: analizator CHNS.[35] [36]
- Siarka
- Wynik oznaczenia wynosi 1,02 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,17 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: analizator CHNS.[35] [36]
- Fosfor
- Wynik oznaczenia wynosi 0,94 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,03 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: metoda szczegółowa dla P nie została jednoznacznie przypisana w odczytanej części metod.[35] [36]
- Sód
- Wynik oznaczenia wynosi 22,01 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 3,83 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: fotometria płomieniowa.[35] [36]
- Potas
- Wynik oznaczenia wynosi 31,2 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,75 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: fotometria płomieniowa.[35] [36]
- Wapń
- Wynik oznaczenia wynosi 0,68 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,12 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Magnez
- Wynik oznaczenia wynosi 0,67 mg/g. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 0,01 mg/g (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Glin
- Wynik oznaczenia wynosi 39,07 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 3,26 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Miedź
- Wynik oznaczenia wynosi 53,95 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 2,4 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Żelazo
- Wynik oznaczenia wynosi 223,05 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 38,74 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Nikiel
- Wynik oznaczenia wynosi 22,41 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 3,93 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Chrom
- Wynik oznaczenia wynosi 30,92 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 2,94 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: ICP–MS.[35] [36]
- Mangan
- Wynik oznaczenia wynosi 55,6 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 5,75 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: ICP–MS.[35] [36]
- Selen
- Wynik oznaczenia wynosi 26,43 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 1,09 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: ICP–MS.[35] [36]
- Molibden
- Wynik oznaczenia wynosi 61,22 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 5,91 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: ICP–MS.[35] [36]
- Cynk
- Wynik oznaczenia wynosi 30,58 mikrograma na gram. Wynik odnosi się do suchej masy badanego materiału. Niepewność: 4,77 mikrograma na gram (odchylenie standardowe). Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: atomowa spektrometria absorpcyjna.[35] [36]
- Stosunek molowy OA/(Ca+Mg)
- Wynik oznaczenia wynosi 0,4. Metoda według źródła: stosunek molowy podany przez autorów; OA — kwas szczawiowy, PA — kwas fitynowy.[35] [36]
- Stosunek molowy PA/Fe
- Wynik oznaczenia wynosi 0,16. Metoda według źródła: stosunek molowy podany przez autorów; OA — kwas szczawiowy, PA — kwas fitynowy.[35] [36]
- Stosunek molowy PA/Ca
- Wynik oznaczenia wynosi 0,13. Metoda według źródła: stosunek molowy podany przez autorów; OA — kwas szczawiowy, PA — kwas fitynowy.[35] [36]
- Stosunek molowy PA/Zn
- Wynik oznaczenia wynosi 6,33. Metoda według źródła: stosunek molowy podany przez autorów; OA — kwas szczawiowy, PA — kwas fitynowy.[35] [36]
- Białko ogółem
- Wynik oznaczenia wynosi 312 mg/g. Wynik odnosi się do suchej masy badanego materiału. Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: metoda Bradforda.[35] [36]
- Fenole ogółem — oznaczenie Folina–Ciocalteu
- Wynik oznaczenia wynosi 38,33 mg/g. Wynik odnosi się do suchej masy badanego materiału. Statystyka: średnia. n = 3 (powtórzenia podane w źródle; pomiary biochemiczne). Metoda według źródła: metoda Folina–Ciocalteu; kalibrant nie jest jednoznacznie wskazany w odczytanej części metod.[35] [36]
Badania ekologiczne
Uzupełniające źródła występowania
Bułgaria: Assyov (2023) opisał stanowisko w Borowcu w górach Riła: 8 października 2016 r. i 13 listopada 2020 r., okazy SOMF29917 i SOMF30896. Rosły pod Salix caprea i Betula pendula w młodym lesie mieszanym iglastym; obecność brzozy w siedlisku nie jest dowodem mikoryzy z brzozą. Dwa miesiące zbiorów nie wyznaczają pełnego sezonu kraju. Historyczny bułgarski zapis nazwy T. ramentaceum z 1955 r. autor uznał za niepewny, bez odnalezionego okazu.
Słowacja: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), s. 28, wymienia zbiór S. Glejdury pod wierzbami w arboretum Borová hora w Zwoleniu, 320 m n.p.m., 11 października 1995 r. Rok wskazuje podsumowanie listy znalezisk z 1995 r. Odczytany wpis potwierdza październikową obserwację, nie cały słowacki sezon. Nazwa w źródle zachowała historyczny zapis autorstwa.
Wielka Brytania: Norfolk Fungus Study Group publikuje 20 zapisów z 17 stanowisk w latach 1988–2025. Wpisy datowane przypadają na październik–grudzień; Felthorpe Woods ma zbiór z 22 grudnia 1988 r. Rejestr obejmuje m.in. Whitlingham Marsh, Horsey Warren, Thetford i Holt. Powiązania z wierzbą lub sosną zapisano jako obserwowane sąsiedztwo, bez domyślnego potwierdzania partnera korzeniowego. Danych Norfolk nie uogólniono na pełny sezon całej Wielkiej Brytanii.
Holandia: Atlas NDFF określa gatunek jako pospolity na podstawie zweryfikowanych obserwacji z lat 2004–2023. Osobno przywołuje kategorię narażony z czerwonej listy 2008; częstość i kategoria zagrożenia opisują inne zagadnienia. Wskazuje ubogi w próchnicę piasek i związek z Salix repens. Wykres fenologii jest modelowany z obserwacji 2000–2021; nie przepisano z niego nieodczytanych wartości liczbowych.
[14] [19] [18] [17]Siedlisko i występowanie
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Źródła |
|---|---|---|---|
| Bułgaria | Nie ustalono regionów w zapisanych danych | X–XI — minimalny zakres obserwacji |
|
| Chiny | Sichuan; Junnan (Yunnan) | VIII–X — minimalny zakres obserwacji |
|
| Czechy | kraj pilzneński; Kraj ustecki | VII–XI |
|
| Dania | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Wielka Brytania | Nie ustalono regionów w zapisanych danych | X–XII — minimalny zakres obserwacji |
|
| Indie | Ladakh; Drass, Ladakh; Kargil, Ladakh | VIII — minimalny zakres obserwacji | |
| Holandia | Nie ustalono regionów w zapisanych danych | Nie ustalono |
|
| Polska | województwo łódzkie; województwo małopolskie; województwo podlaskie; województwo zachodniopomorskie; województwo pomorskie; Siemianowice Śląskie; województwo lubuskie | X–XII — minimalny zakres obserwacji |
|
| Słowacja | Nie ustalono regionów w zapisanych danych | X — minimalny zakres obserwacji |
|
Źródła
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka