
Ядомы

Патрабуе апрацоўкі

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.
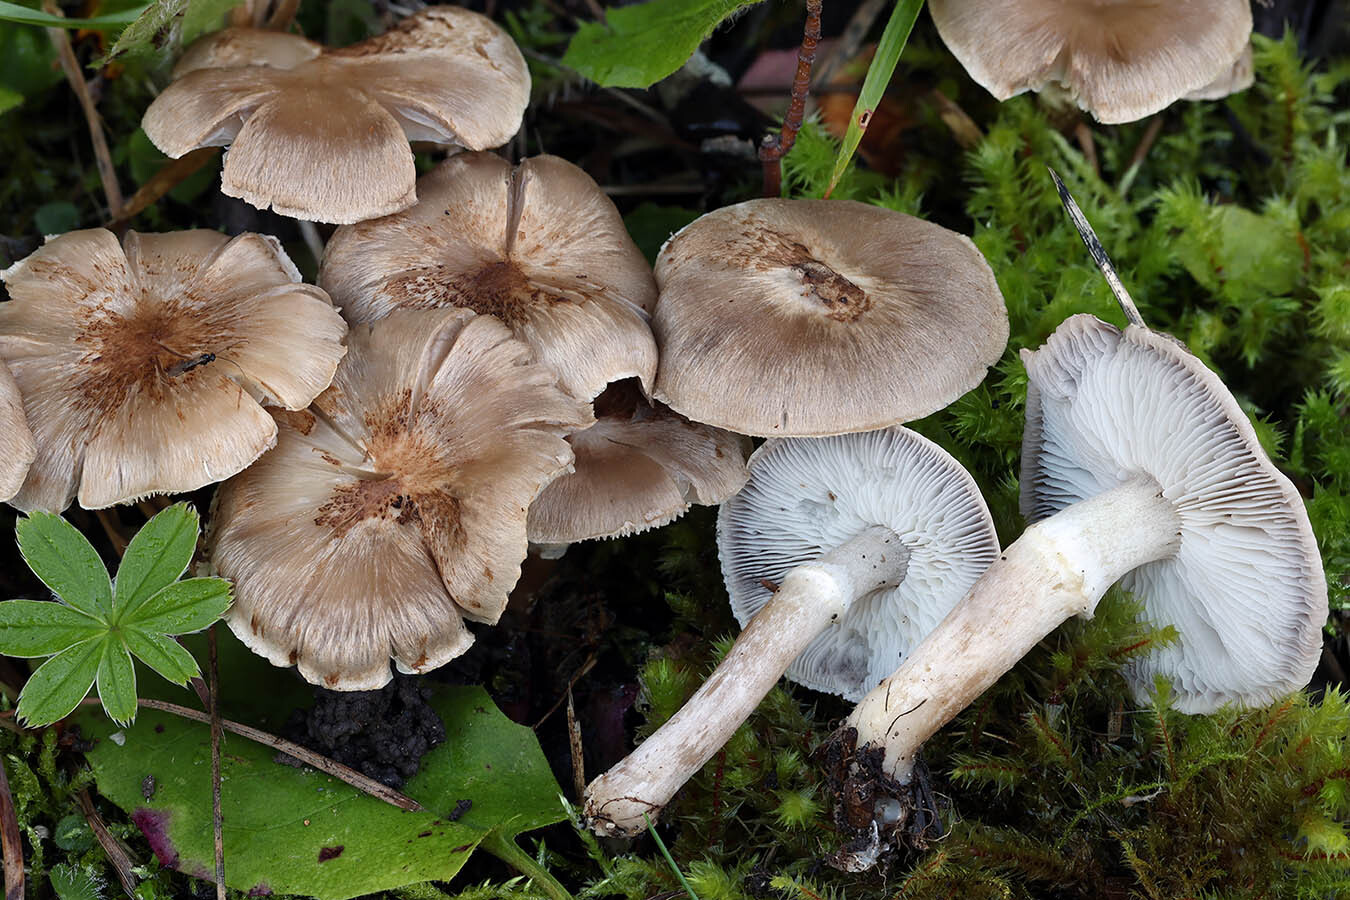
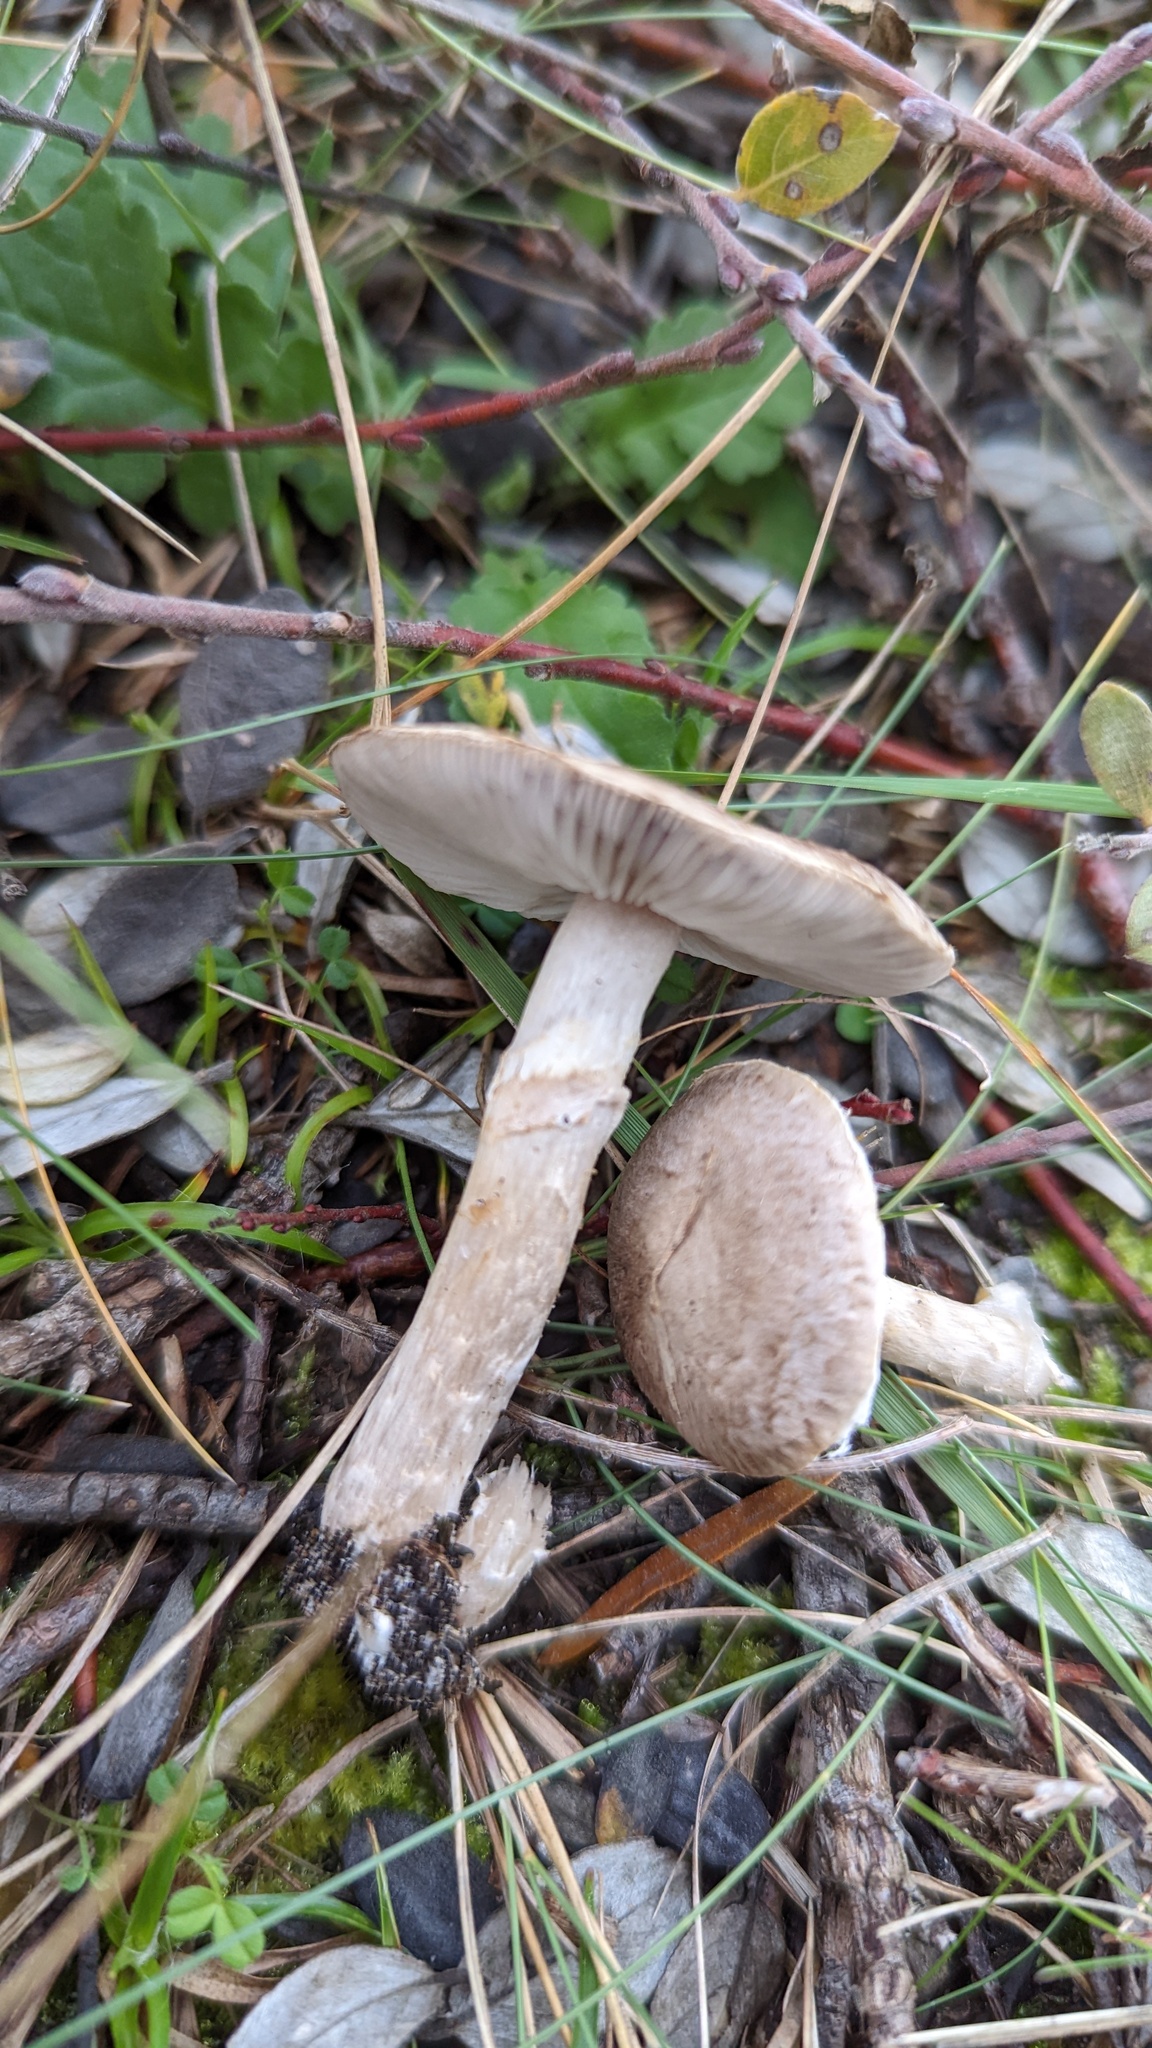
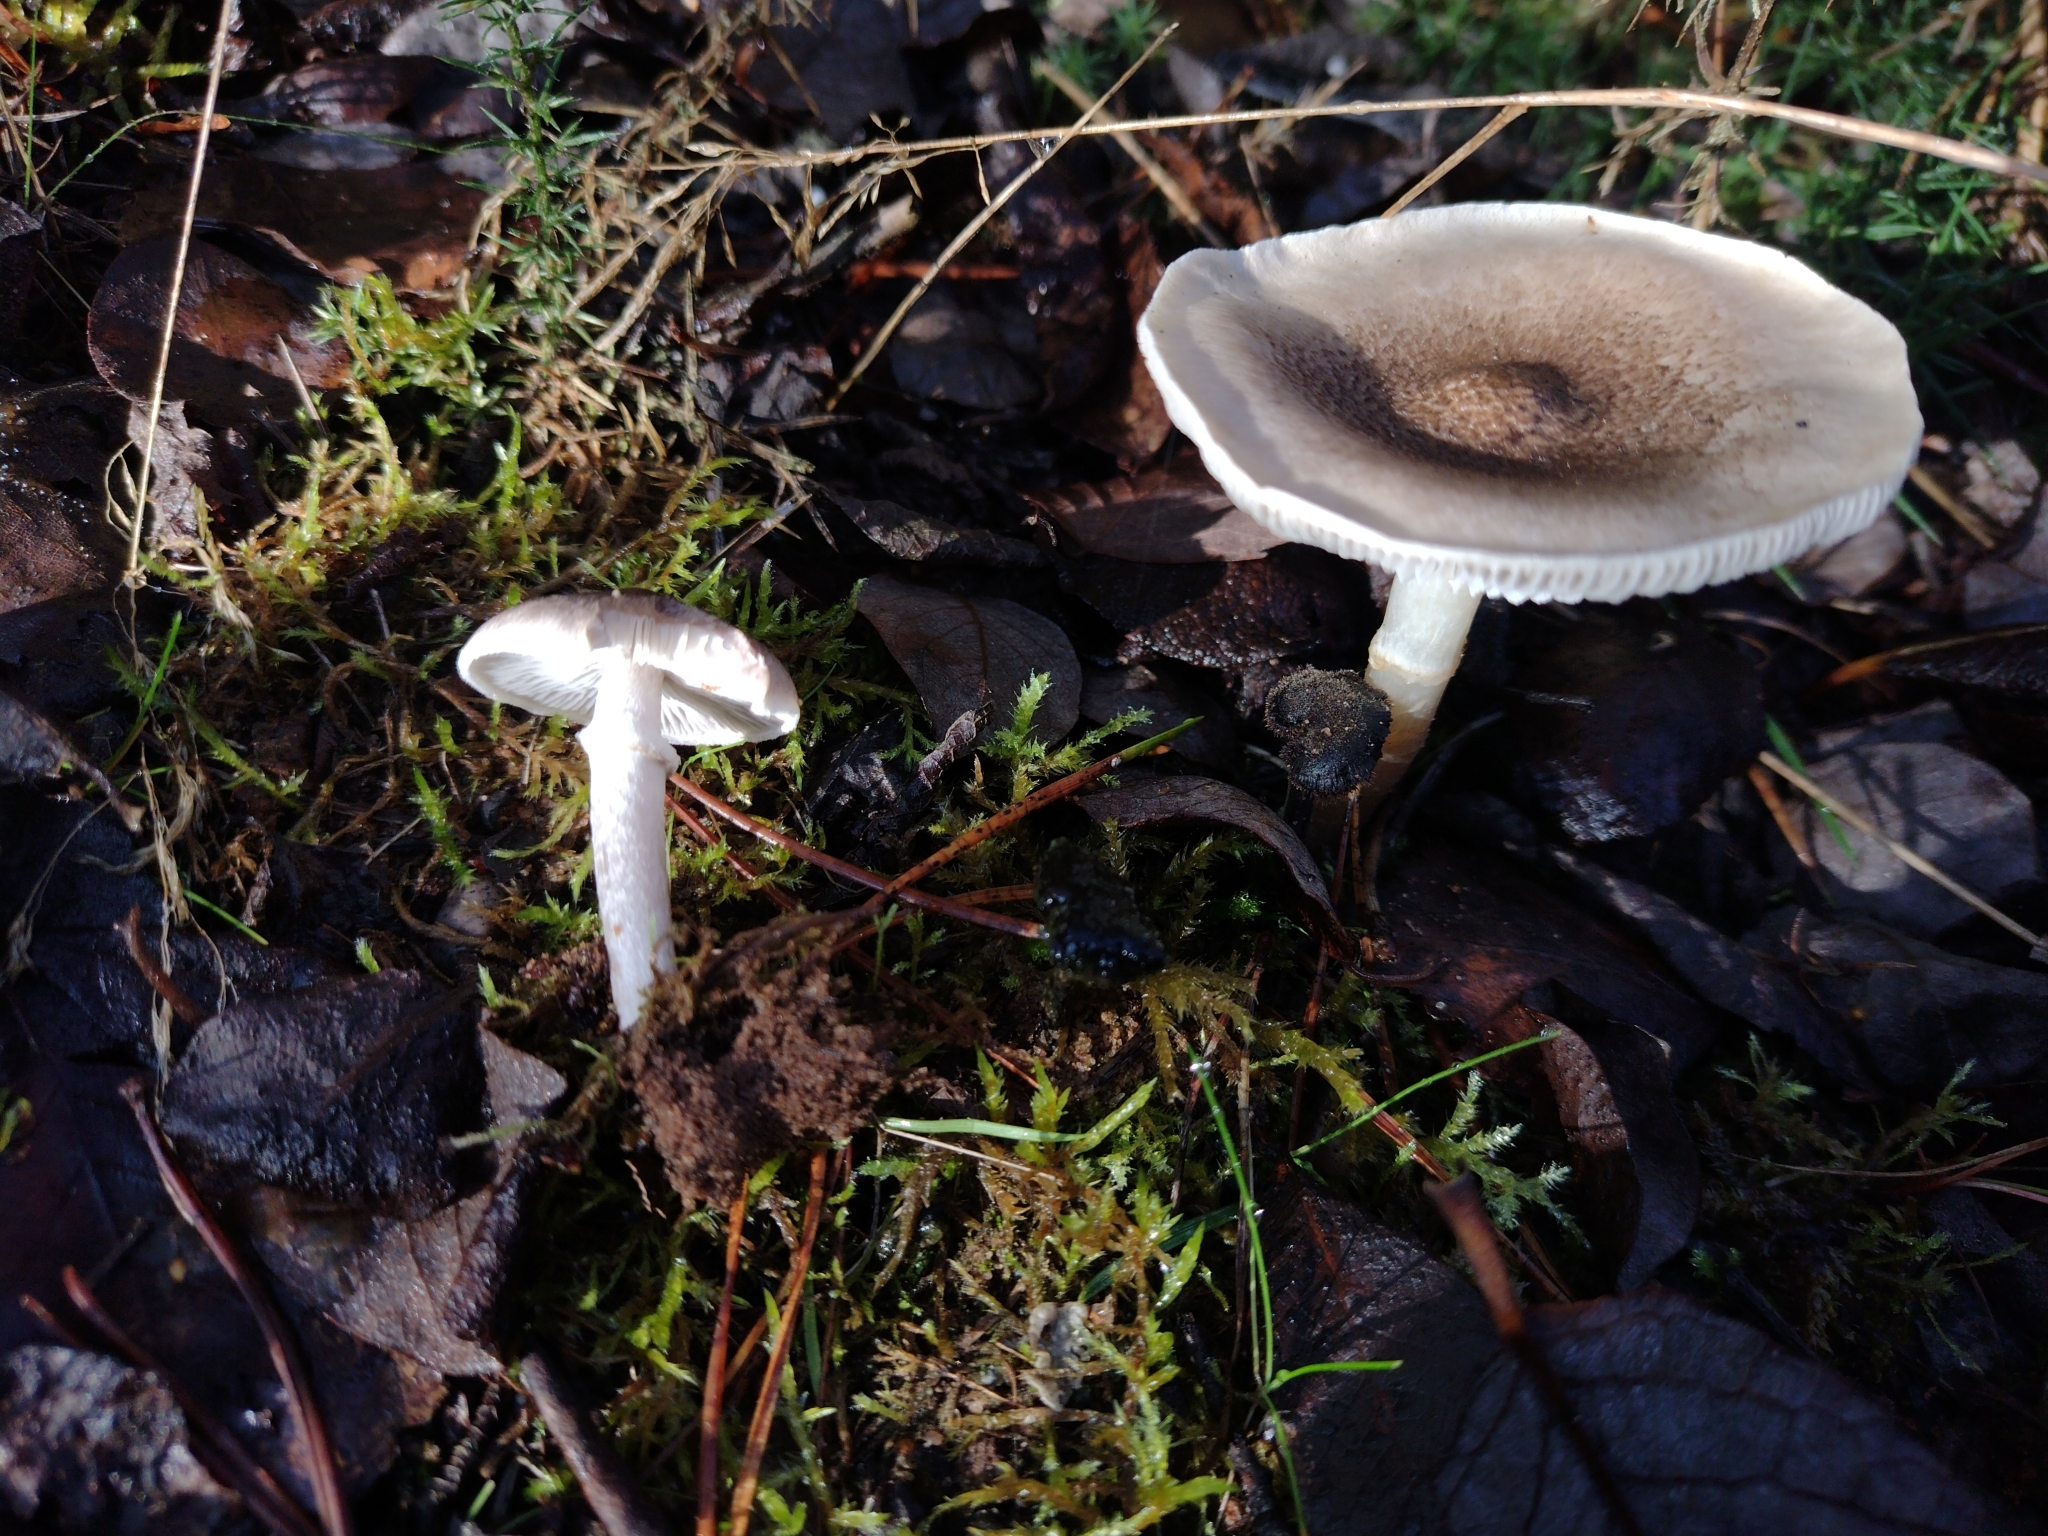
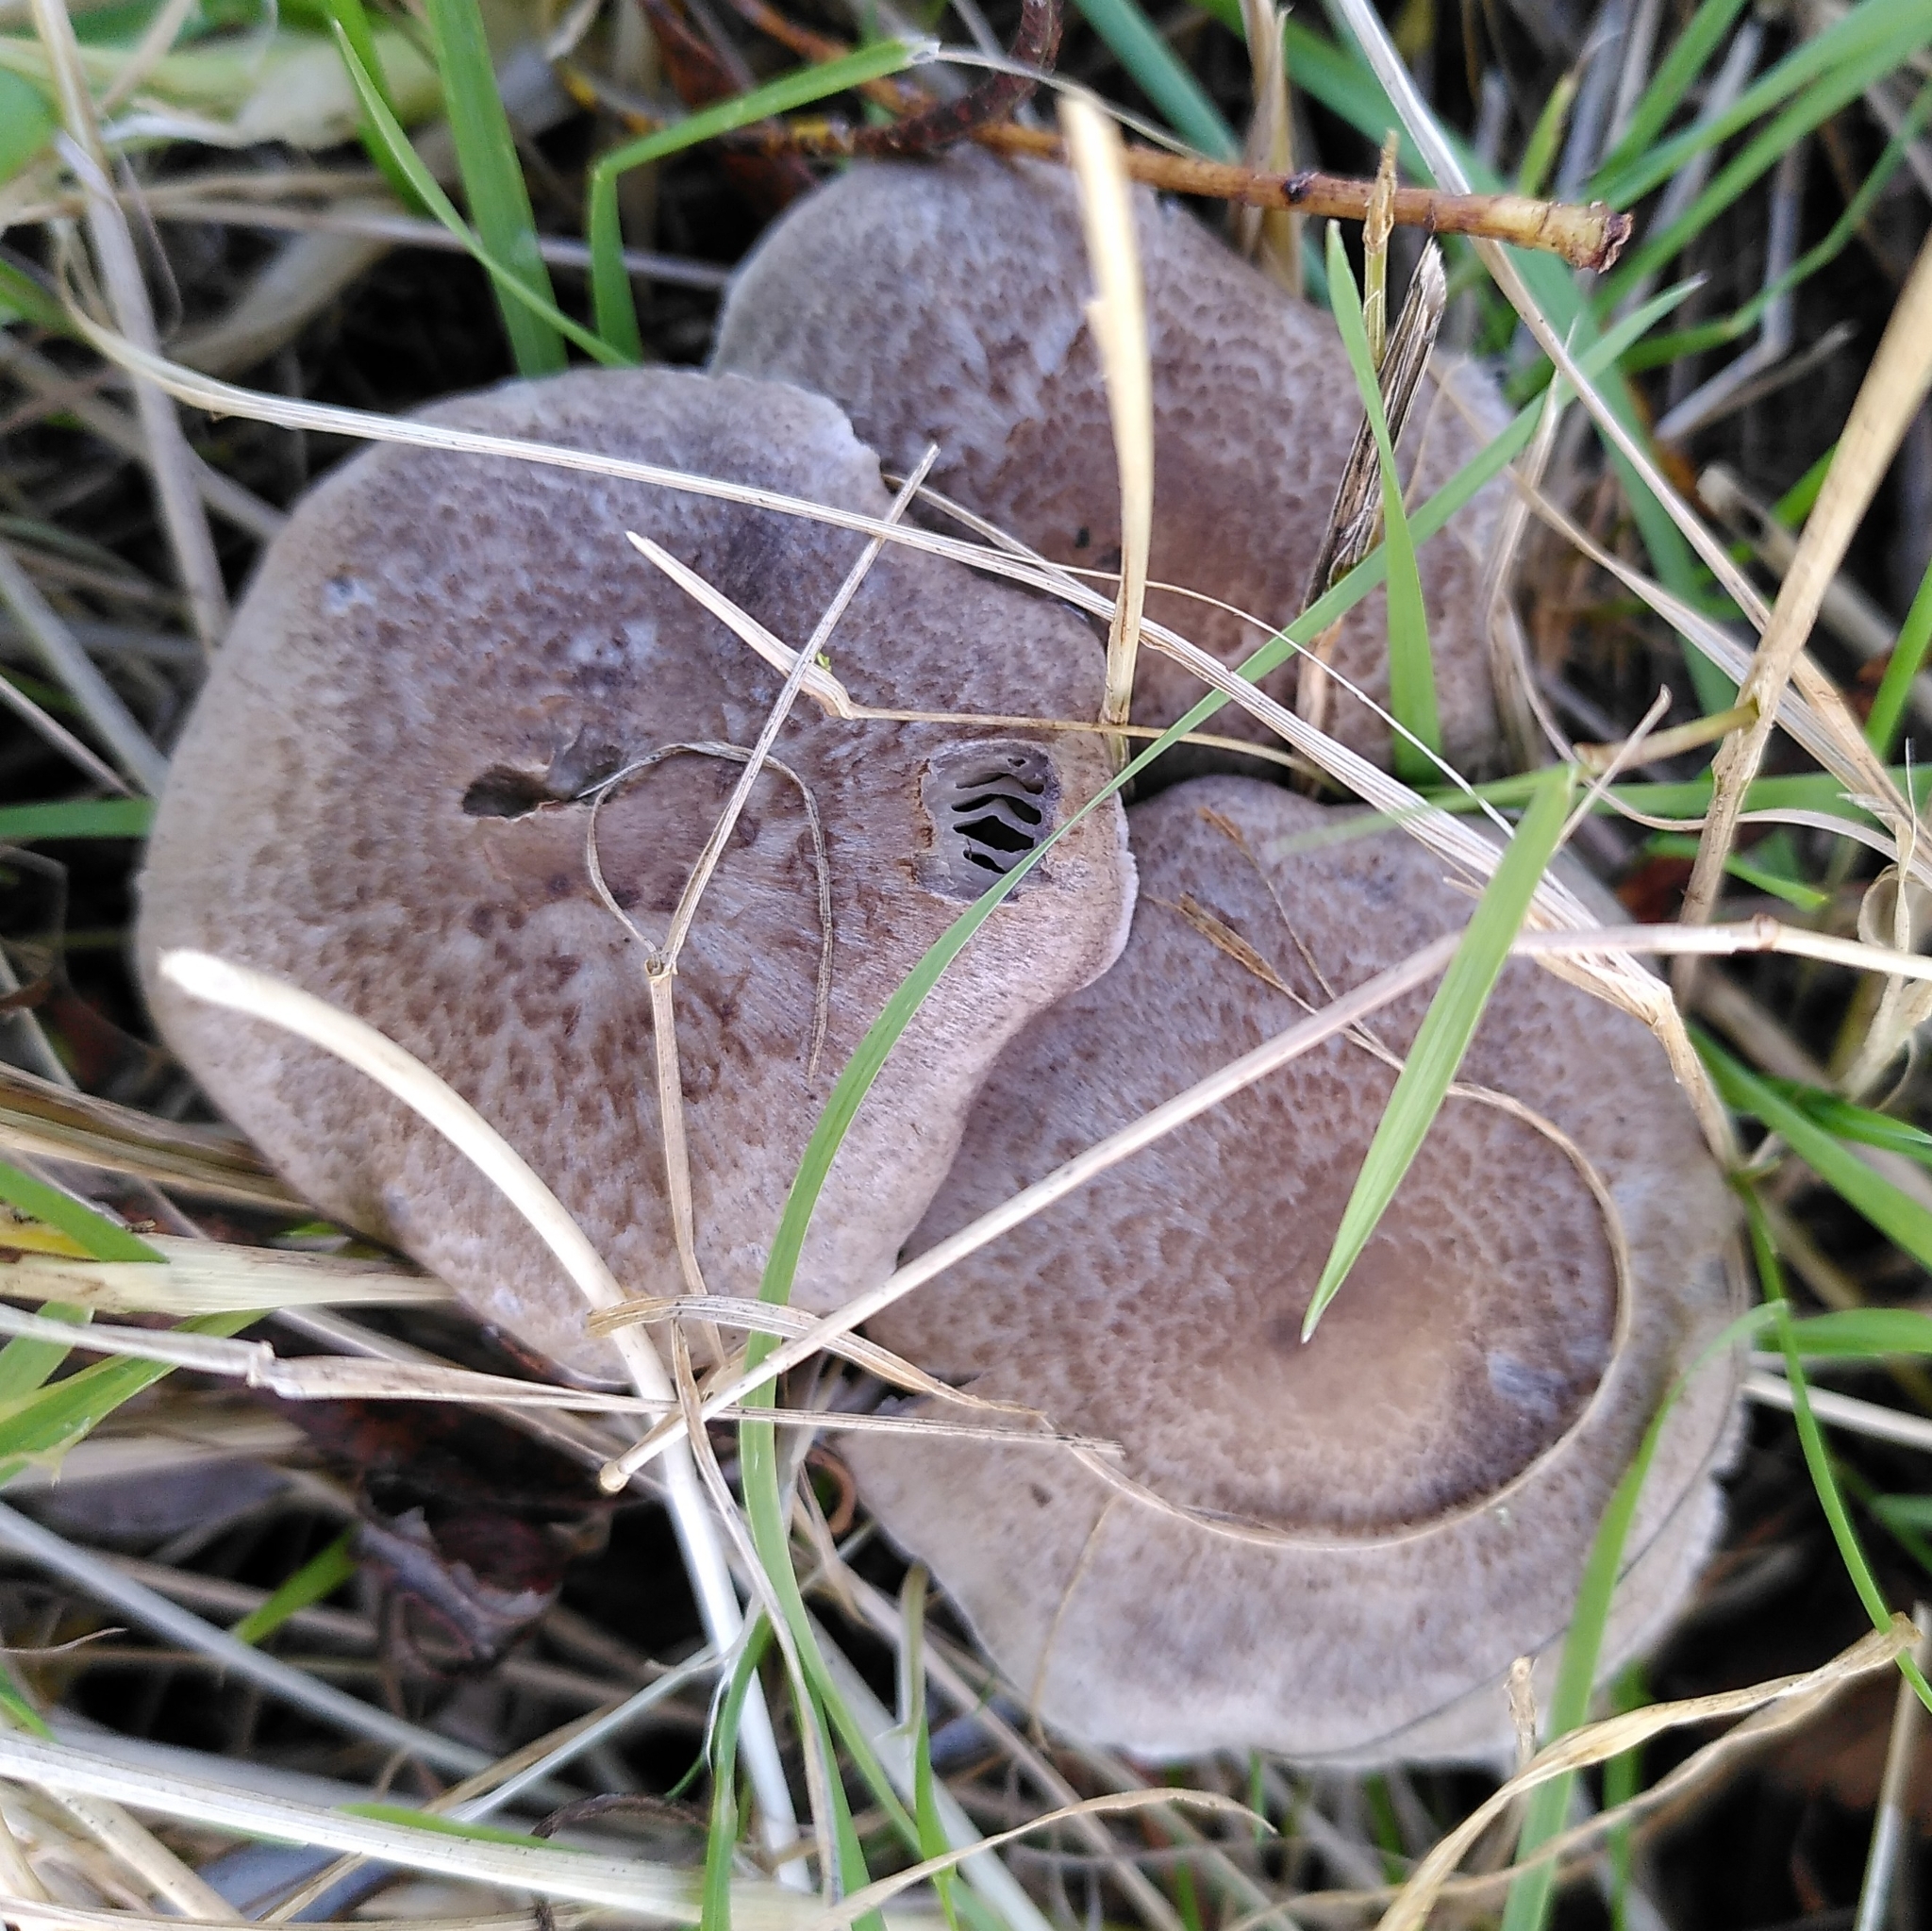
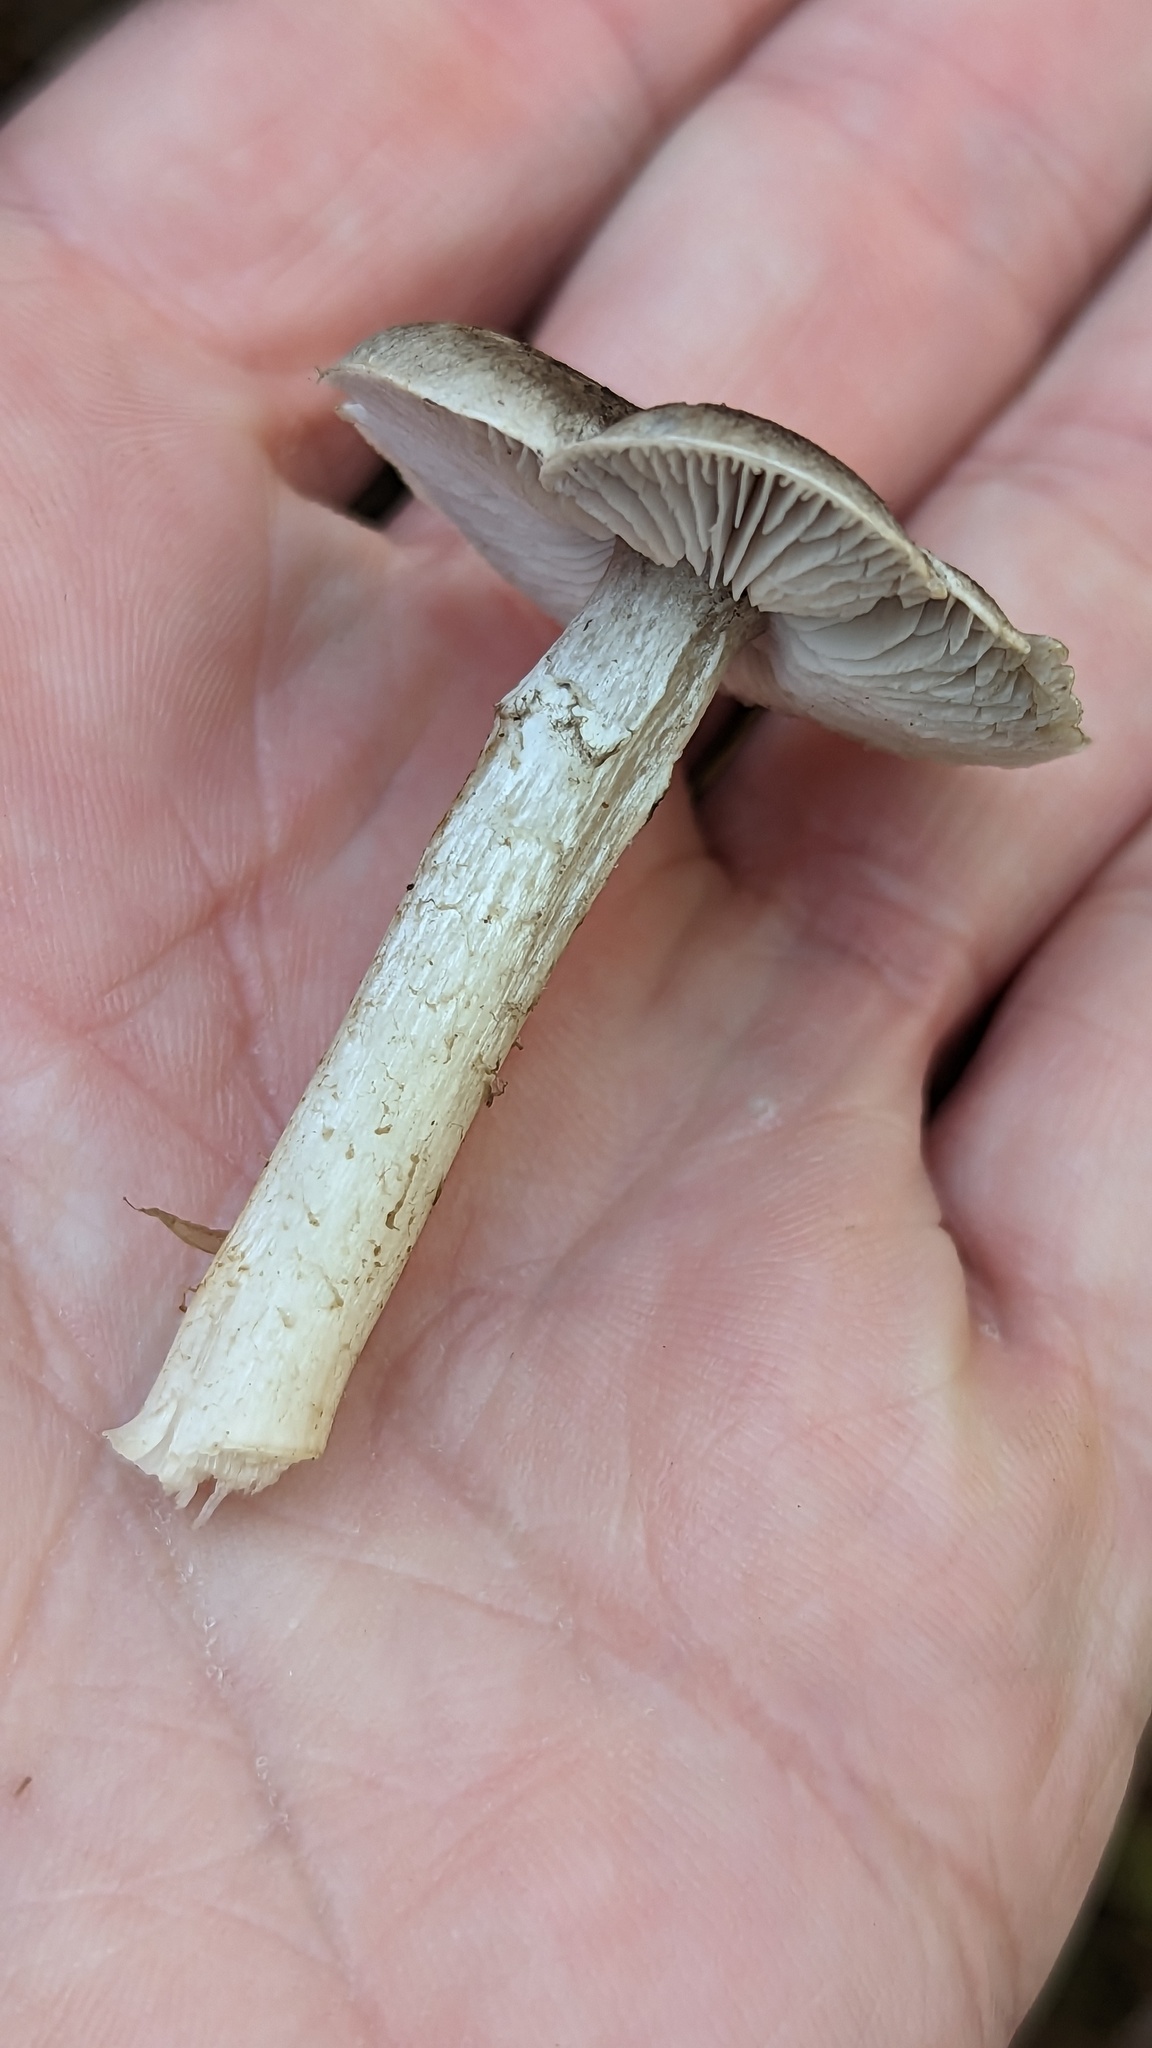
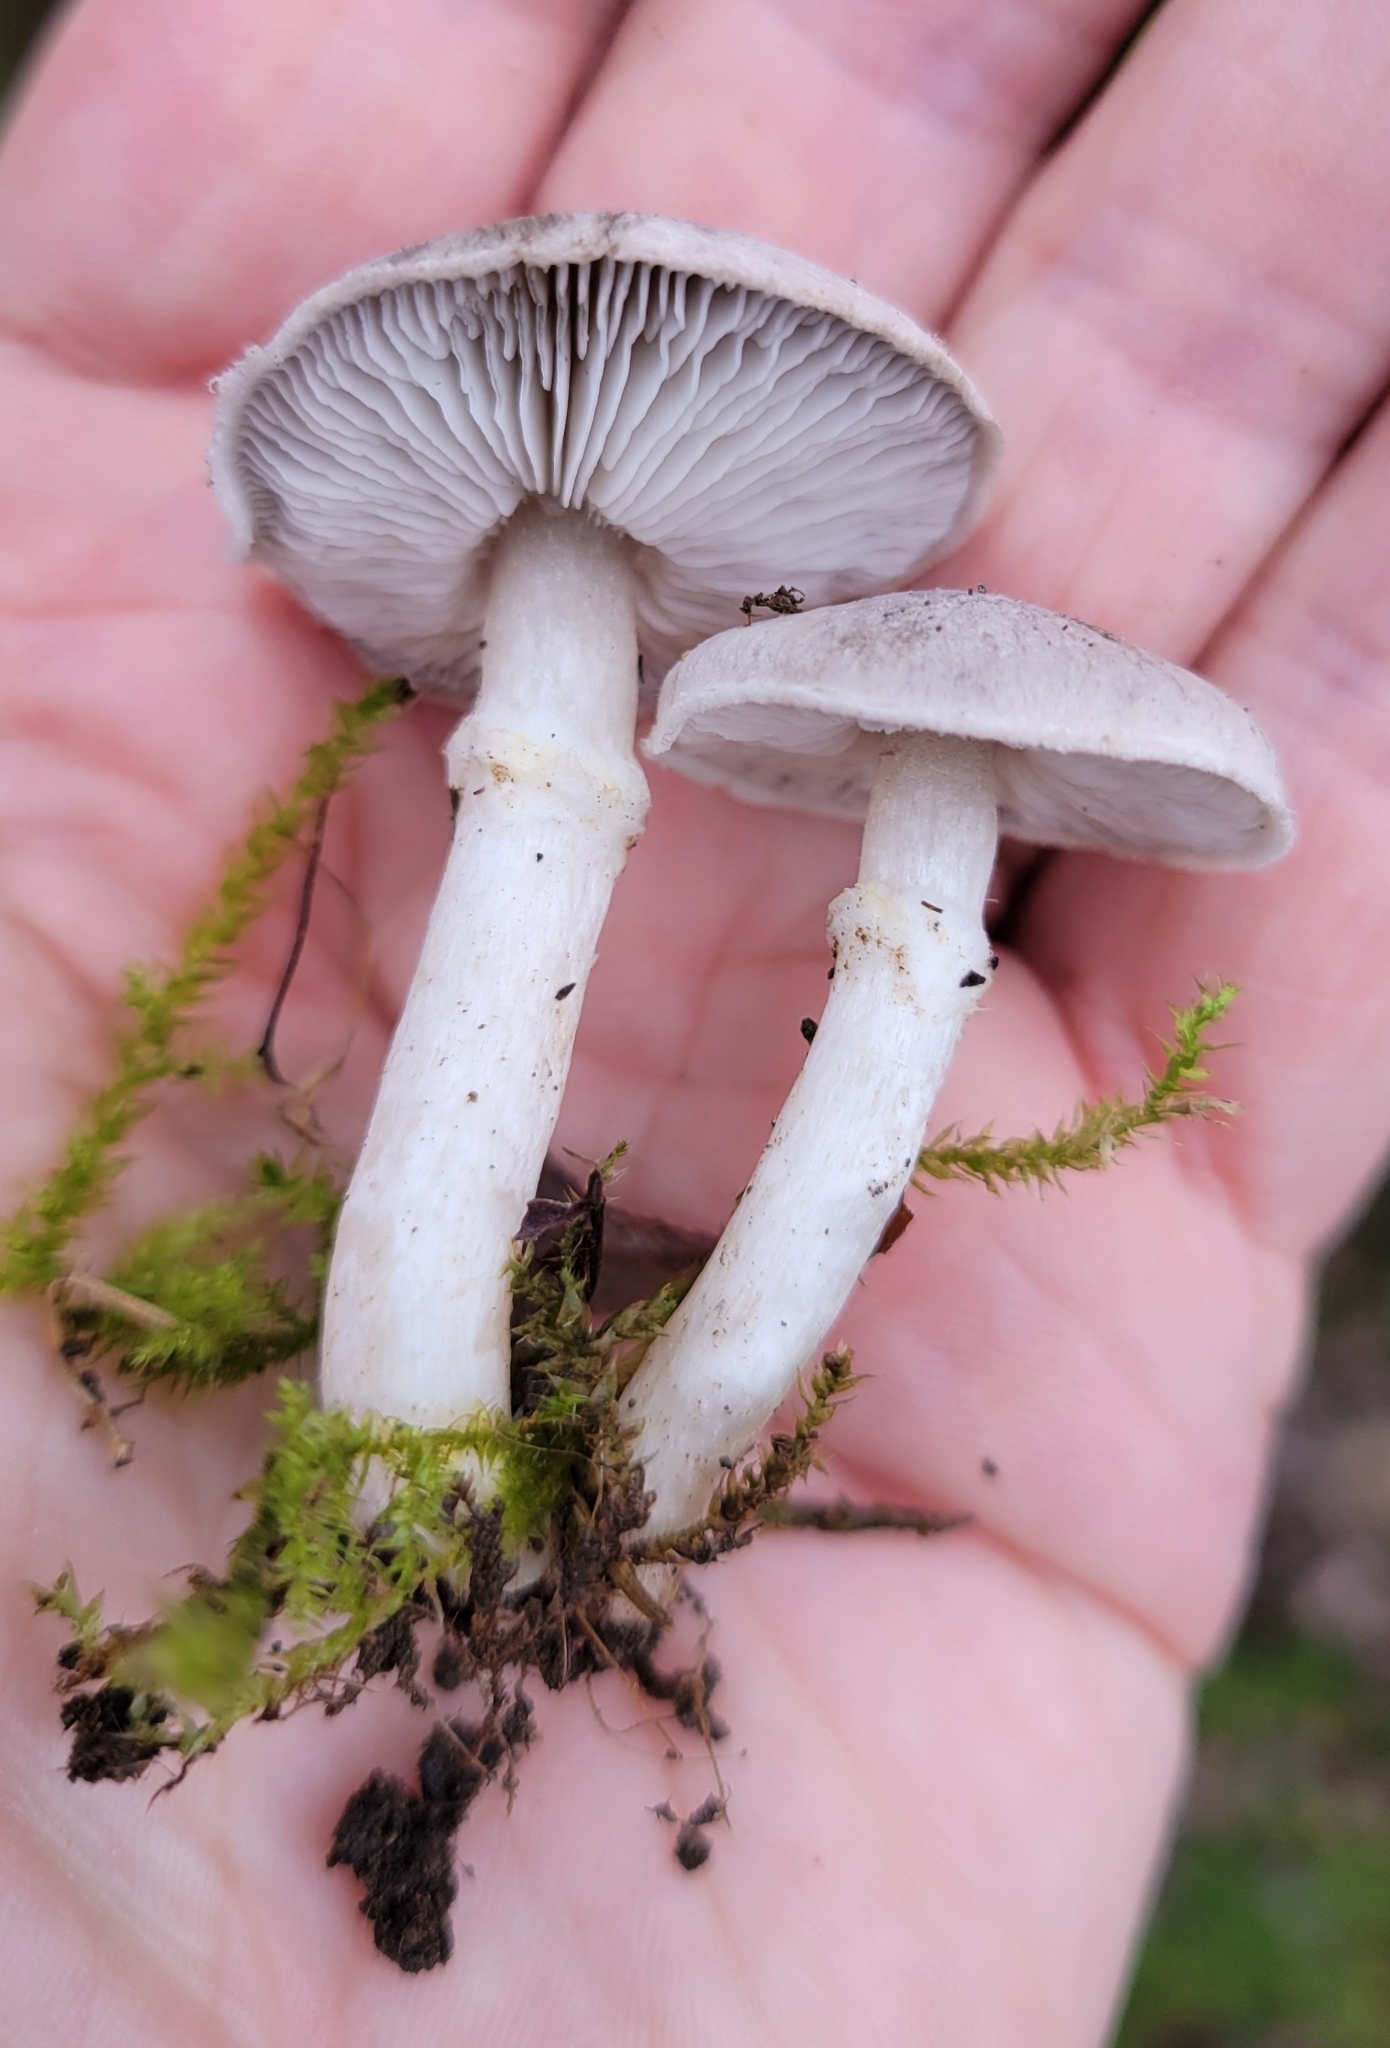
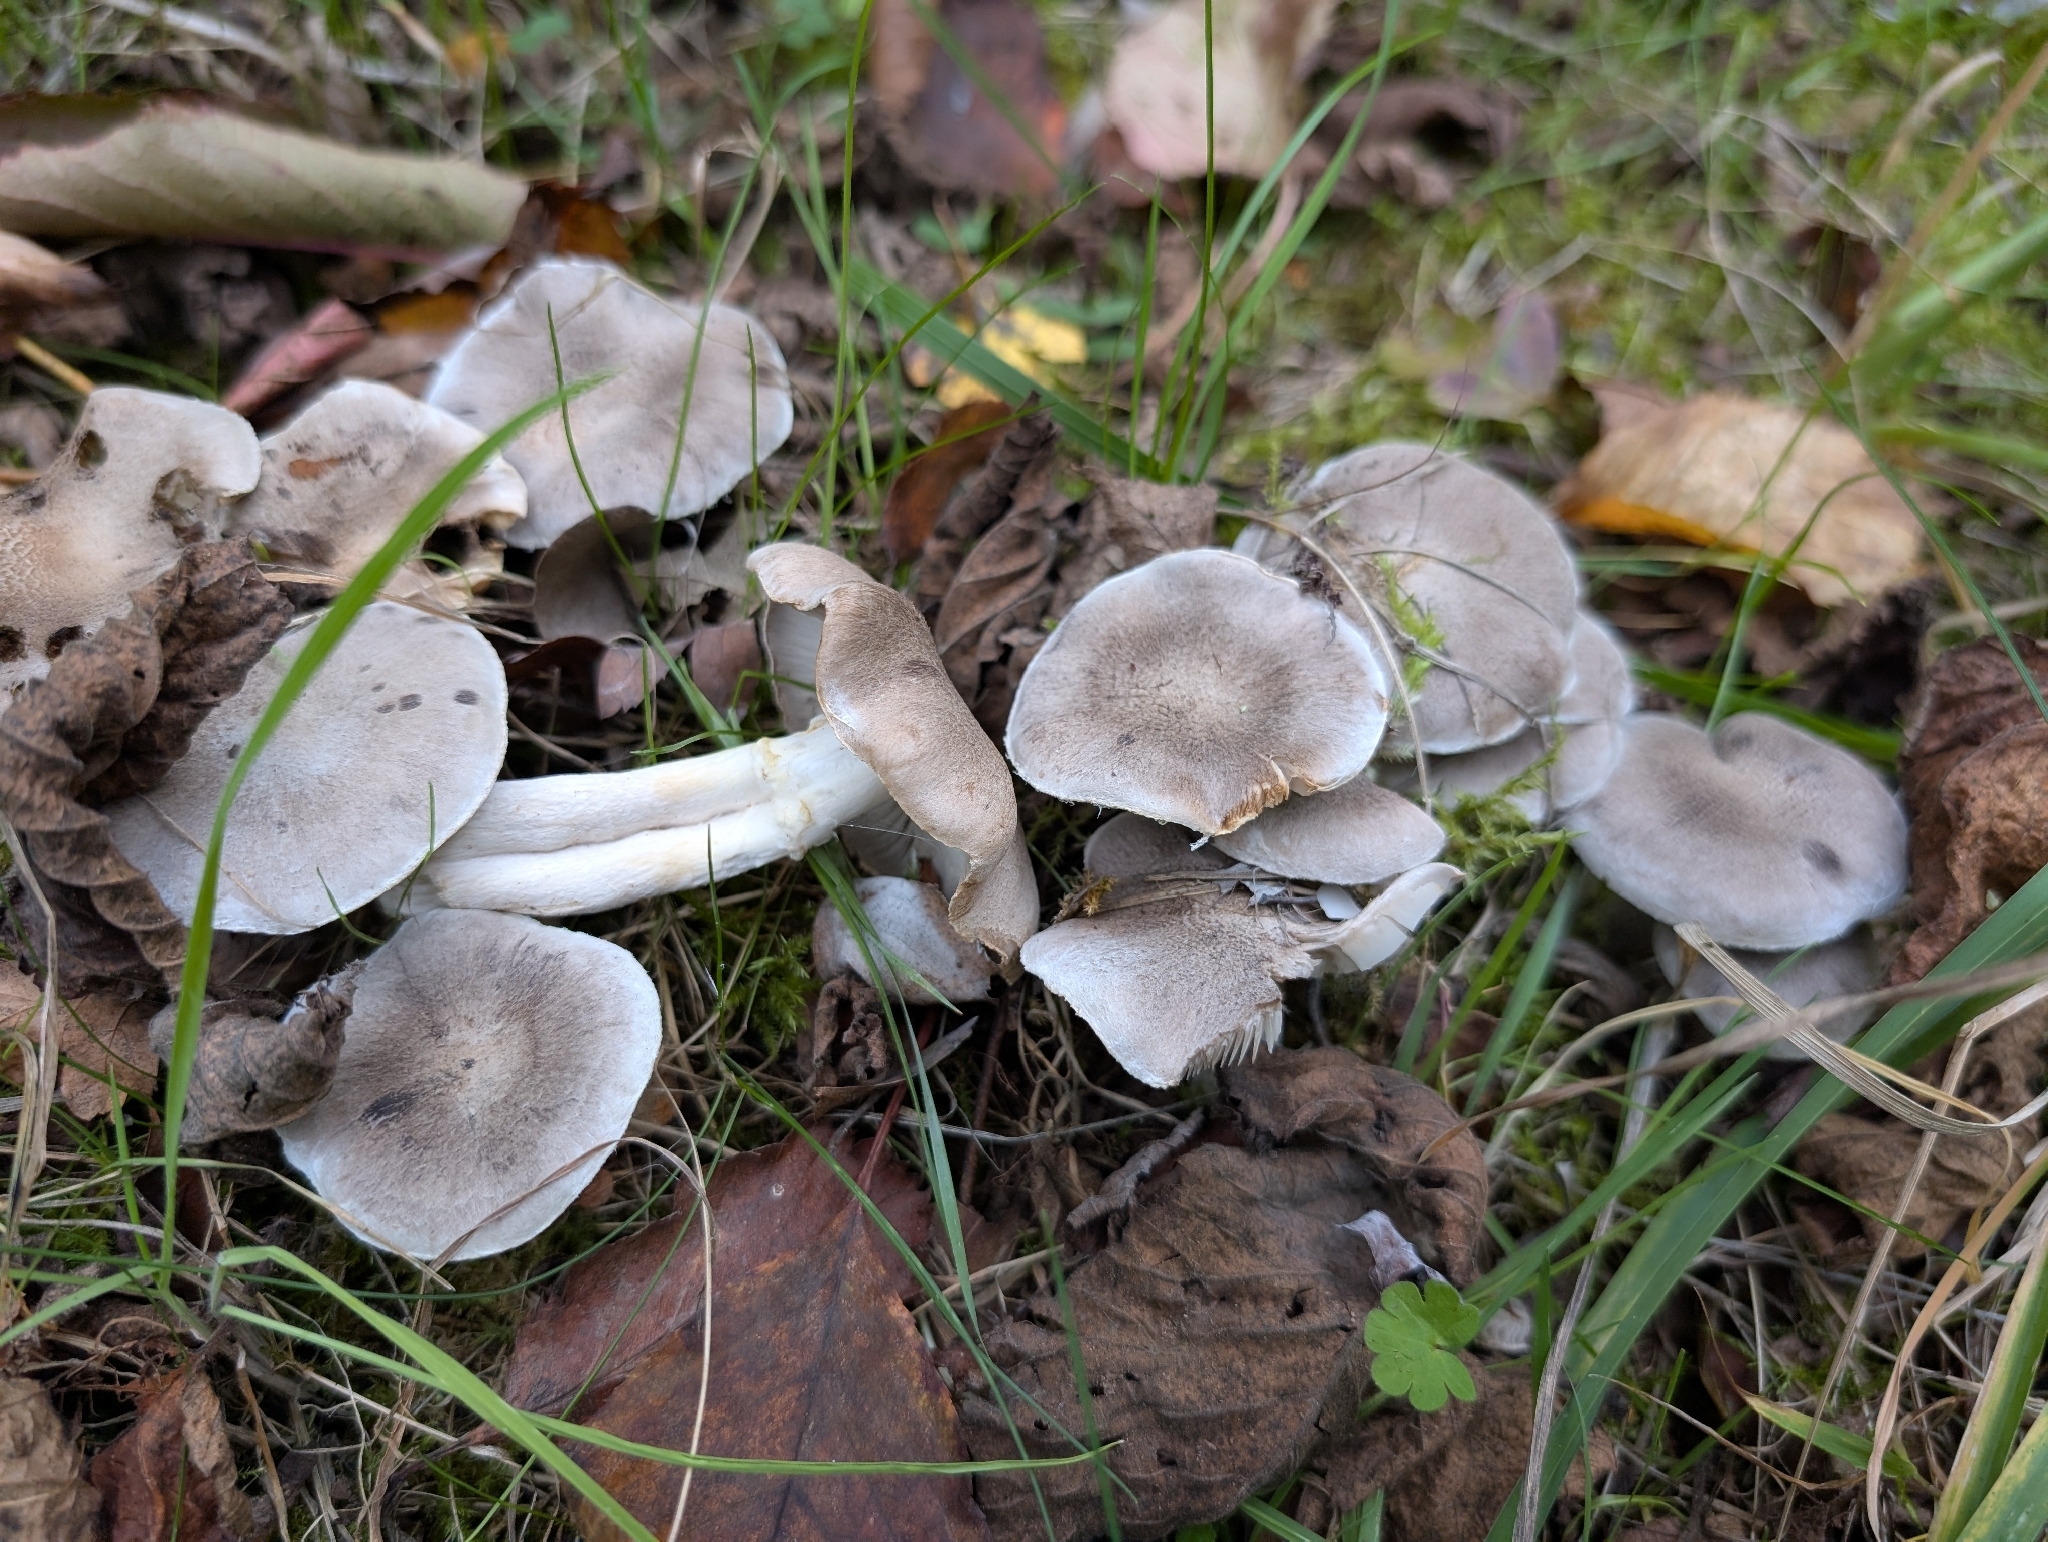


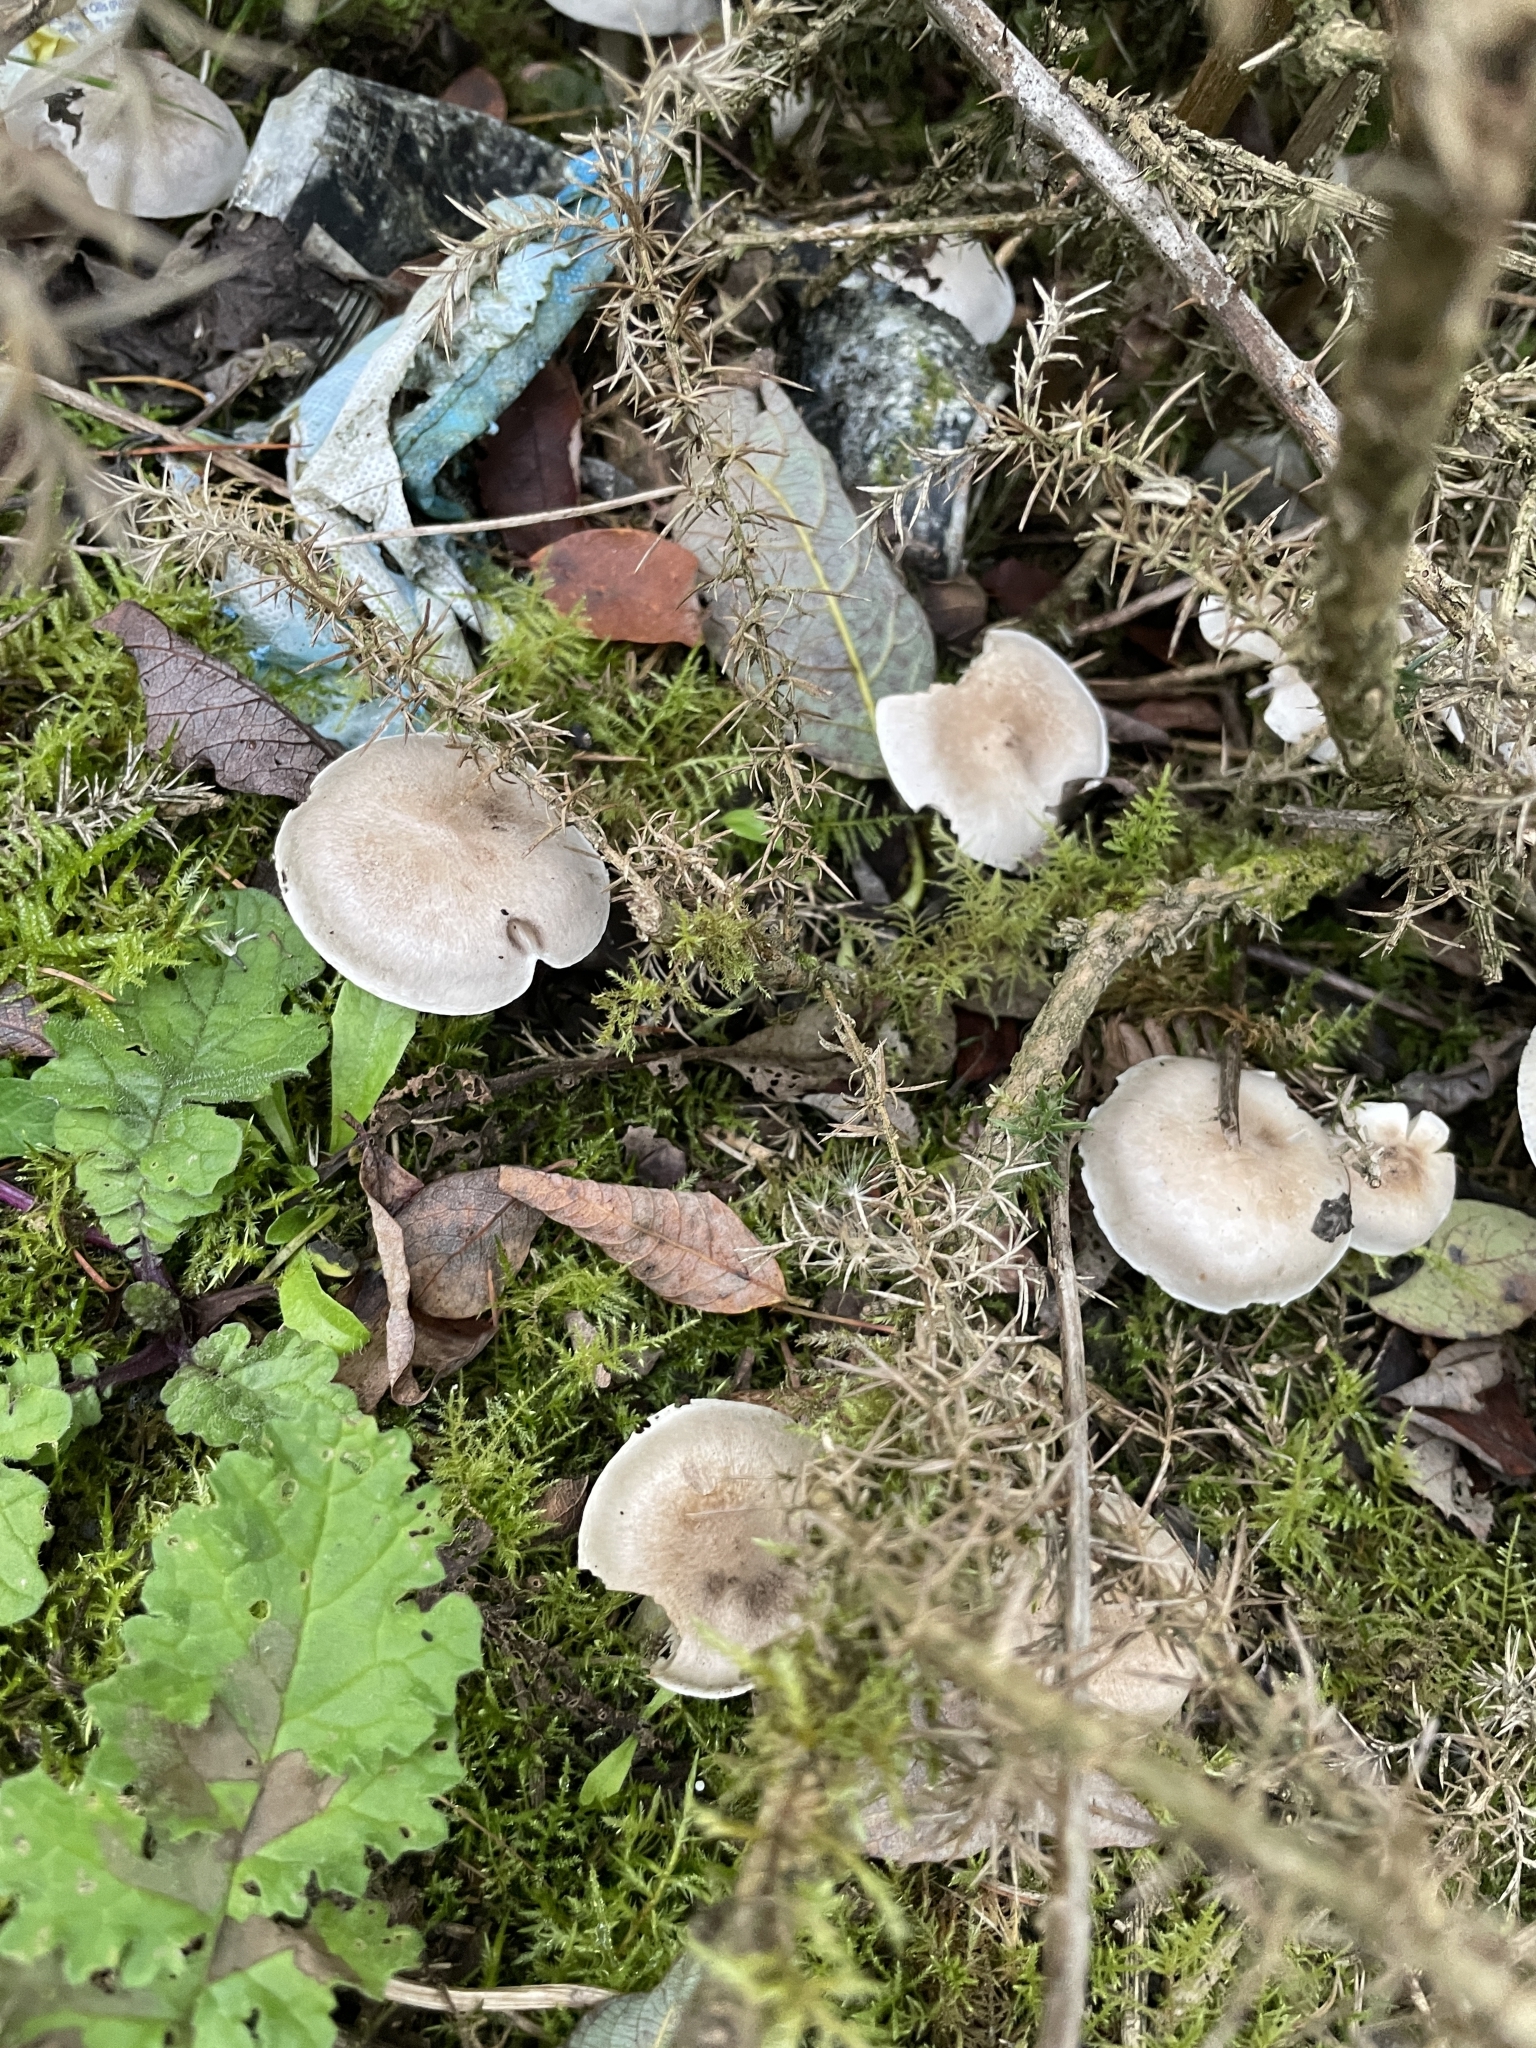
Радоўка апяразаная (Tricholoma cingulatum) — пластоўчаты шапкавы грыб сямейства Tricholomataceae. Галоўнай адметнасцю гэтага віду з'яўляецца наяўнасць добра выяўленага кудзелістага або перапончатага кольца на ножцы, што рэдка сустракаецца сярод іншых радовак. Шапачка шараватая ці попельная, дробналускаватая, а мякаць мае характэрны мучны пах. Від з'яўляецца мікарызаўтваральнікам вербаў і лічыцца ядомым грыбам мясцовага значэння, прыдатным да спажывання пасля папярэдняга адварвання.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- Форма капялюшыка: паўшарападобны або звонападобны.
Форма капялюшыка: плоскі.
Форма капялюшыка: выпуклы.
Форма капялюшыка: выпуклы (сплясканы профіль). - Паверхня капялюшыка
- Паверхня капялюшыка: сухі.
- Покрыва капялюшыка
- Покрыва капялюшыка: лямцаватая.
Покрыва капялюшыка: лускаватая (дробныя лускавінкі).
Покрыва капялюшыка: лускаватая (дробныя лускавінкі, шэра-карычневае покрыва).
Покрыва капялюшыка: лускаватая (дробныя лускавінкі, аліўкавыя).
Покрыва капялюшыка: лускаватая (карычневыя).
Покрыва капялюшыка: лускаватая (шэра-карычневае покрыва). - Бляск паверхні капялюшыка
- Бляск паверхні капялюшыка: матавы.
- Колер капялюшыка
- Колер капялюшыка: шэраваты.
Колер капялюшыка: белы.
Колер капялюшыка: шэры (светлае адценне).
Колер капялюшыка: шэра-карычневы. - Размяшчэнне краю
- Размяшчэнне краю: падгорнуты ўнутр.
у маладых пладовых цел: Размяшчэнне краю: загнуты ўсярэдзіну. - Абрыс краю капялюшыка
- Абрыс краю капялюшыка: хвалісты.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 30–60 mm.
- Цэнтр капялюшыка
- Цэнтр капялюшыка: з выразным гарбком (тупы бугарок, часам).
Цэнтр капялюшыка: з выразным гарбком. - Частковае покрыва
- у маладых пладовых цел: Частковае покрыва: наяўны (ад краю шапачкі да ножкі, белаватая, павуцінападобная).
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: пласцінкі.
Пласцінкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (пласцінкі).
Прымацаванне гіменафора да ножкі: вольны ад ножкі (пласцінкі). - Профіль гіменафора каля ножкі
- Профіль гіменафора каля ножкі: выемчаты каля ножкі (пласцінкі).
- Нызыходжанне гіменафора па ножцы
- Нызыходжанне гіменафора па ножцы: сыходны зубчыкам (пласцінкі).
- Прыродны колер паверхні пласцінкі
- Прыродны колер паверхні пласцінкі: белаватая.
Прыродны колер паверхні пласцінкі: шэры.
у спелых пладовых цел: Прыродны колер паверхні пласцінкі: жаўтаваты.
Прыродны колер паверхні пласцінкі: белаватая.
Прыродны колер паверхні пласцінкі: крэмавы. - Адлегласць паміж пласцінкамі
- Адлегласць паміж пласцінкамі: умерана густыя.
Адлегласць паміж пласцінкамі: блізка размешчаныя. - Вышыня пласцінак
- Вышыня пласцінак: 2–4 mm.
- Наяўнасць кароткіх пласцінак
- Наяўнасць кароткіх пласцінак: наяўны.
- Колькасць шэрагаў даўжыні пласціначак
- Колькасць шэрагаў даўжыні пласціначак: 2–3.
Ножка і аснова
- Форма ножкі
- Форма ножкі: цыліндрычны.
- Колер ножкі
- Колер ножкі: белаватая або шэра-карычневы.
Колер ножкі: белы або белаватая.
Колер ножкі: белы. - Покрыва паверхні ножкі
- Покрыва паверхні ножкі: Лямцавая і валакністая.
у верхняй частцы ножкі: Покрыва паверхні ножкі: шматкаватая або лускаватая. - Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
- Даўжыня ножкі
- Даўжыня ножкі: 30–80 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 5–15 mm.
Кольца
- Наяўнасць кольца
- Наяўнасць кольца: наяўны.
Наяўнасць кольца: наяўны.
Наяўнасць кольца: наяўны. - Будова матэрыялу кольца
- Будова матэрыялу кольца: ватападобны.
Будова матэрыялу кольца: ватападобны.
Будова матэрыялу кольца: ватападобны. - Становішча кольца
- Становішча кольца: у верхняй частцы ножкі.
Становішча кольца: у верхняй частцы ножкі. - Колер кольца
- Колер кольца: белаватая.
Колер кольца: белы.
Мякаць
- Колер мякаці
- Колер мякаці: белаватая.
Колер мякаці: белы або крэмавы. - Шчыльнасць мякаці
- Шчыльнасць мякаці: шчыльны.
- Структура мякаці
- Структура мякаці: валакністы (мякаць ножкі).
- Пах мякаці
- Пах мякаці: мучністы (усё пладовае цела).
Пах мякаці: прыемны (мякаць). - Таўшчыня мякаці шапкі
- Таўшчыня мякаці шапкі: 2–3 mm.
- Смакавыя ноткі
- Смакавыя ноткі: мучністы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лес нявызначанага тыпу.
Месцапражыванне: хвойны лес або змешаны лес.
Месцапражыванне: лісцевы лес, змешаны лес, поймавы лес, узлесак, хмызнякі, рудэральнае або гарадское месцапражыванне, луг або фруктовы сад. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: групамі.
Характар росту пладовых цел: паасобку або рассеяныя групы.
Характар росту пладовых цел: групамі, рассеяныя групы або кругамі. - Частата знаходак
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з кастрычніка да снежня (перыяд назірання, гады назіранняў: 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023, месяцы назіранняў: 10, 11, 12).
- Арэал распаўсюджання
- Potwierdzono występowanie w Polsce.
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
Права
- Ахова
- Від не ўключаны ў польскі пералік ахоўных відаў грыбоў.
- Гандаль
- Від не ўключаны ў польскі пералік грыбоў, дапушчаных да абароту.
FAQ
З якімі раслінамі гэты грыб утварае сімбіёз?
Гэты від з'яўляецца строгім мікарызаўтваральнікам розных відаў вярбы, такіх як вярба лыкавая, белая, попельная і паўзучая.
Дзе часцей за ўсё можна сустрэць радоўку апяразаную?
Яна расце ў вільготных нізінах, на балоцістых узлесках, па берагах вадаёмаў, у вярбоўніках, а таксама ў вільготных пясчаных кар'ерах.
Ці з'яўляецца гэты грыб ядомым?
Так, у атласах ён пазначаны як ядомы грыб сярэдняй якасці. Ацэнкі бяспекі групы T. terreum у сучасных працах разыходзяцца, але дадзеных пра таксічнасць T. cingulatum няма.
Які пах характэрны для мякаці гэтага грыба?
Мякаць радоўкі апяразанай валодае выразным і моцным мучным пахам, які часткова захоўваецца нават пасля гатавання.
Чым гэты від адрозніваецца ад большасці іншых радовак?
Ён мае выразнае кудзелістае кольца (паясок) у верхняй частцы ножкі, што з'яўляецца нетыповай прыкметай для роду Tricholoma.
У які перыяд года назіраецца плоданашэнне?
Асноўны перыяд плоданашэння працягваецца з канца лета (жніўня) да позняй восені (лістапада), да надыходу ўстойлівых маразоў.
Ці патрабуецца зліваць ваду пасля адварвання?
Так, зліванне першага адвару абавязковае, каб выдаліць магчымыя гаркаватыя рэчывы і лішак спецыфічнага мучнога паху.
Ці шырока вядомы гэты грыб сярод масавых збіральнікаў?
Не, з-за вузкай прымеркаванасці да вербаў і спецыфічнага выгляду яго збіраюць пераважна дасведчаныя мясцовыя знаўцы.
Ці выкарыстоўваецца гэты від у экалагічным аднаўленні зямель?
Так, яго даследуюць і ўжываюць для інакуляцыі саджанцаў вярбы пры рэкультывацыі парушаных вільготных біятопаў і тарфянікаў.
Якая геаграфічная распаўсюджанасць гэтага віду?
Від сустракаецца ва ўмеранай зоне Еўропы і Паўночнай Азіі, паўсюль, дзе існуюць прыдатныя вільготныя зараснікі вярбы.
Аматар
Назвы і гісторыя
- Афіцыйная нацыянальная назва
- Gąska wierzbowa
- Афіцыйная таксанамічная назва
- Tricholoma cingulatum
- Астатнія назвы
- gąska obuta
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзіце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: белы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: эліпсоідны. Форма споры: цыліндрычны. Форма споры: эліпсоідны (шырокі). Форма споры: эліпсоідны. Форма споры: эліпсоідны (падоўжаны).
- Паверхня споры
- Паверхня споры: гладкі. Паверхня споры: гладкі.
- Памеры споры
- Даўжыня 4–7,2 µm, шырыня 2,5–4,2 µm.
- Памеры споры
- Даўжыня 5,2 µm, шырыня 3,1 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Salix repens (агульны пералік партнёраў).
- Тып жыўлення
- Тып жыўлення: эктамікарызны.
Некулінарнае ўжыванне
Некулінарнае прымяненне радоўкі апяразанай найперш звязана з экалагічнымі біятэхналогіямі і прыкладной мікалогіяй. Дзякуючы строгай мікарызнай спецыялізацыі на вербах, гэты від выкарыстоўваецца ў праектах па рэкультывацыі парушаных ландшафтаў. Мікарызаваныя саджанцы вярбы высаджваюць на тэрыторыях выпрацаваных тарфянікаў, затопленых кар'ераў і дэградаваных пойменных зямель. Грыб паляпшае прыжывальнасць і рост драўняных пасадак, спрыяючы хуткаму ўмацаванню берагавой лініі і стабілізацыі эрадзіраваных глеб.
У сферы традыцыйнага і мастацкага фарбавання тэкстылю плодавыя целы радоўкі апяразанай выкарыстоўваюцца майстрамі па натуральнай афарбоўцы тканін. Воўну і шоўк фарбуюць воднымі адварамі гэтых грыбоў з выкарыстаннем квасцоў у якасці пратравы. У выніку тканіны набываюць спакойныя, устойлівыя шэра-аліўкавыя, бэжавыя і дымчата-попельныя адценні, якія высока цэняцца ў аўтарскім экалагічным рамястве.
Акрамя таго, від актыўна выкарыстоўваецца ў навуковых і асветніцкіх мэтах у галіне мікаіндыкацыі. Прысутнасць гэтай радоўкі ў вярбовых насаджэннях служыць важным паказчыкам стабільнасці гідралагічнага рэжыму і натуральнага стану прыбярэжных фітацэнозаў.
Гісторыя і культура
Радоўка апяразаная мае сваё спецыфічнае месца ў гісторыі мікалогіі і рэгіянальнай народнай культуры. Від быў упершыню навукова апісаны ў XIX стагоддзі вядомым шведскім міколагам Эліясам Фрысам, які звярнуў увагу на нетыповую марфалогію — наяўнасць пояса-кольца на ножцы, што і дало грыбу відавы эпітэт «cingulatum» (апяразаны). Гэта знаходка выклікала цікавасць сярод батанікаў таго часу, бо парушала агульнае правіла аб адсутнасці кольцаў у роду Tricholoma.
У традыцыйнай народнай культуры лясных рэгіёнаў Еўропы гэты грыб рэдка вылучаўся ў асобную знакавую катэгорыю і звычайна аб'ядноўваўся з іншымі шэрымі радоўкамі пад зборнымі назвамі накшталт «падузроўка», «шэрык» або «вербавік». У лакальных супольнасцях, цесна звязаных з рачнымі і пойменнымі ландшафтамі, існавала прыкмета: з'яўленне шэрых апяразаных грыбоў пад вербамі сведчыла пра канчатковы прыход восені і пачатак сезона нарыхтовак лазы для пляцення.
У сучаснай літаратуры, прысвечанай ахове прыроды і біяразнастайнасці, гэты від часта выступае як сімвал уразлівых пойменных і прыбярэжных экасістэм. Ён згадваецца ў рэгіянальных спісах рэдкіх грыбоў у краінах, дзе натуральныя вільготныя вербнікі дэградуюць пад уплывам меліярацыі.
Ядомасць і бяспека
Радоўка апяразаная класіфікуецца як умоўна-ядомы грыб, прыдатны для спажывання толькі пасля належнай тэрмічнай апрацоўкі. У сырым выглядзе ўжываць гэты грыб недапушчальна, паколькі ён утрымлівае раздражняльныя рэчывы, здольныя выклікаць страўнікава-кішачныя расстройствы. Абавязковым этапам падрыхтоўкі з'яўляецца папярэдняе адварванне ў падсоленай вадзе на працягу 15–20 хвілін. Пасля адварвання булён неабходна цалкам зліць і прамыць плодавыя целы чыстай вадой, каб нейтралізаваць непрыемны прысмак.
Асноўныя рызыкі спажывання звязаны з экалогіяй месца росту. Паколькі вярбовыя зараснікі часта сустракаюцца ўздоўж меліярацыйных каналаў, прамысловых зон і прыдарожных канаў, плодавыя целы могуць назапашваць цяжкія металы і сельскагаспадарчыя забруджвальнікі з паверхневых вод. Таму важна збіраць грыбы толькі ў экалагічна чыстых месцах.
Смакавыя ўласцівасці віду лічацца пасярэднімі. Мякаць мае моцны, часам празмерна інтэнсіўны мучны пах і трохі зямлісты смак, які не кожнаму да спадобы. У кулінарнай культуры краін Паўночнай і Усходняй Еўропы, такіх як Фінляндыя, Польшча ці краіны Балтыі, гэты грыб часам нарыхтоўваюць метадам салення або марынавання з вострымі спецыямі, якія дапамагаюць змякчыць мучны пах.
Месцапражыванне і сустракальнасць
Радоўка апяразаная (Tricholoma cingulatum) належыць да экалагічна спецыялізаваных відаў з выразным арэалам ва ўмеранай зоне Еўразіі. Від шырока распаўсюджаны ў Паўночнай, Цэнтральнай і Усходняй Еўропе, а таксама фіксуецца ў асобных рэгіёнах Сібіры і Далёкага Усходу. Яго прысутнасць непасрэдна лімітуецца распаўсюджваннем кармавых раслін, з якімі ён фармуе эктамікарызную сувязь.
Асноўнымі біятопамі для гэтага віду служаць вільготныя нізіны, рачныя і азёрныя поймы, уздоўжбярэжныя хмызнякі, забалочаныя лугі, тарфянікі, а таксама вільготныя выемкі і пясчаныя выпрацаваныя кар'еры. Грыб утварае строгі сімбіёз выключна з прадстаўнікамі роду вярба (Salix). Сярод партнёраў адзначаюцца вярба попельная (Salix cinerea), вярба трохтычынкавая (Salix triandra), вярба казіная (Salix caprea), а таксама нізкарослыя хмызняковыя формы, такія як вярба паўзучая (Salix repens) на дзюнах і тарфяных лугах.
Сезон з'яўлення плодавых целаў пачынаецца ў канцы лета — звычайна ў жніўні — і працягваецца да позняй восені, часта аж да лістапада. Масавае развіццё адбываецца ў верасні і кастрычніку пасля багатых восеньскіх дажджоў. У паўднёвых і больш мяккіх прыморскіх частках арэала адзінкавыя асобнікі могуць сустракацца нават на пачатку снежня пры адсутнасці маразоў.
Крыніцы
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Даследчык
Ядомасць і кулінарыя
Высновы крыніц: ядомасць, ужыванне і выкарыстанне
- Ядомасць
- Ядомы — крыніца вызначэння
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Кулінарнае выкарыстанне: У атласах звычайна пазначаецца як ядомая; бягучая групавая засцярога захавана ў Даследчыку.
- Патрэбная апрацоўка
- Патрабуе апрацоўкі
FAQ gatunku: obróbka termiczna · literal_statements/0 і/1: патрабаванне тэрмічнай апрацоўкі ў FAQ. Гэта запіс рэдакцыйнага зместу, не вынік таксікалагічнага эксперыменту.
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[29] [32]
Экалогія і распаўсюджванне
- Частата знаходак
- Нідэрланды: Частата знаходак: звычайны. [17]
Лабараторная дыягностыка
Структураваныя даныя
Базідыі
Пражка
Гіменіяльныя цыстыды
Астатнія лабараторныя прыкметы
- Даўжыня
- Даўжыня: 35–150 µm. [8]
- Таўшчыня сценкі
- Таўшчыня сценкі: 1 µm (прыблізнае значэнне). [8]
Таўшчыня сценкі: 0,5–1 µm (прыблізнае значэнне). [8] - Таўшчыня сценкі — якасная ацэнка
- Таўшчыня сценкі — якасная ацэнка: танкасценны. [33]
Таўшчыня сценкі — якасная ацэнка: танкасценны. [8]
Таўшчыня сценкі — якасная ацэнка: таўстасценны (нязначна). [8] - Будова субгіменія
- Будова субгіменія: гіфальная. [8]
Скурка шапкі
- Аптычны выгляд гіф скуркі шапкі
- Аптычны выгляд гіф скуркі шапкі: гіялінавы. [8]
- Размяшчэнне гіфаў скуркі капялюшыка
- Размяшчэнне гіфаў скуркі капялюшыка: радыяльны. [8]
Размяшчэнне гіфаў скуркі капялюшыка: пераплеценыя. [8] - Даўжыня элементаў скуркі шапкі
- Даўжыня элементаў скуркі шапкі: 50–180 µm. [33]
- Шырыня элементаў скуркі капялюшыка
- Шырыня элементаў скуркі капялюшыка: 4–10 µm. [8]
Шырыня элементаў скуркі капялюшыка: 4–8 µm. [33]
Рэакцыі з рэактывамі
Споры
- Сярэднія суадносіны даўжыні і шырыні споры
- Сярэднія суадносіны даўжыні і шырыні споры: 1,7 (стандартнае адхіленне: 0,15, сярэдняе значэнне). [8] [7]
- Наяўнасць прыдатка рубчыка базідыяспоры
- Наяўнасць прыдатка рубчыка базідыяспоры: наяўны (адносна вялікі). [8]
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: гіялінавы. [5]
Колер спор пад мікраскопам: гіялінавы. [8] - Даўжыня споры
- Даўжыня споры: 4,5–6 µm. [5]
Даўжыня споры: 5,5–7,2 µm. [33]
Даўжыня споры: 4–6,5 µm. [8]
Даўжыня споры: 5,2 µm (сярэдняе значэнне). [8] - Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 1,4–2. [8]
Суадносіны даўжыні і шырыні споры: 1,25–1,38. [33] - Форма споры
- Форма споры: эліпсоідны. [5]
Форма споры: цыліндрычны. [5]
Форма споры: эліпсоідны (шырокі). [33]
Форма споры: эліпсоідны. [8]
Форма споры: эліпсоідны (падоўжаны). [8] - Таўшчыня сценкі споры
- Таўшчыня сценкі споры: танкасценны. [8]
Трама гіменафора
Матэрыял і метады даследаванняў
Мікраскапічныя даныя — крыніца і абмежаванні
Матэрыял: Выбарка [61/3/2]: 61 спор з 3 пладовых цел і 2 калекцый. Сукупнасць вымярэнняў не атаясамлівалася з поўным пералікам узораў, даследаваных у публікацыі.
Абсяг чытання: Фрагменты крыніц.
Прачытаны фрагмент крыніцы; поўны тэкст і метады не былі верыфікаваныя.
Абмежаванні: Сярэдняе і адхіленне выбаркі не з'яўляюцца межамі адзінкавага Q.
- Вынікі, пададзеныя ў крыніцах — Колькасць спор на базідыі
- Liczba zarodników na jednej podstawce wynosi 4. [33] [8]
- Вынікі, пададзеныя ў крыніцах — Шырыня гіф трамы
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [33]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [33] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [33]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [33]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [33]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [33]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [33]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [33]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [33]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [33]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [33]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [33]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [33]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [33]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [33]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [33]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [33]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [33]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
Матэрыял і метады
Індыя: Mehmood et al. (2022) апісалі дзве калекцыі з Бхімбата ў Драсе, 19 і 20 жніўня 2021 г., TMKVYPS21-39 і 21–43. Яны прывялі n = 20 спор без адназначнага падзелу выбаркі паміж калекцыямі. Зрэзы даследавалі ў 5% KOH і 1% конга чырвоным. Трохчленныя запісы памераў і Q захаваны паводле крыніцы; з-за адсутнасці вызначэння сярэдняга статыстычнага паказчыка ён не пазначаўся адвольна як сярэдняе. Паслядоўнасць OM977115 з 21–39 паказала 100% падабенства да MW628104. У тэксце метады паказваюць MEGA-X, а подпіс да малюнка — MEGA6.0; разыходжанне застаецца пры даследаванні.
Кітай: Cui et al. (2026), секцыя 74: выбарка [61/3/2] азначае 61 спор з 3 пладовых цел і 2 калекцый. Як мінімум 90% вымярэнняў даўжыні прыпадае на 4,5–6 мкм, а поўныя межы складаюць 4–6,5 мкм; шырыня мае поўныя межы 2,5–4 мкм. Qm 1,7 ± 0,15 з'яўляецца сярэднім са стандартным адхіленнем выбаркі. Прэпараты манціравалі ў 5% KOH, конга чырвоны выкарыстоўвалі пры неабходнасці, а амілоіднасць правяралі рэактывам Мельцэра. Для іншых структур пазначаны таксама фазавы кантраст 1000×. СЭМ не прыпісвалася гэтаму віду па змаўчанні. Мал. 93 паходзіць з HKAS106635 і сам па сабе не ідэнтыфікуе ўсю выбарку.
Паўночная Еўропа: Heilmann-Clausen et al. (2017) прыводзяць у агульнай методыцы як мінімум 20 выпадкова выбраных спор на калекцыю і прэпараты ў 2% KOH або 5–10% NH3. Гэтаму віду не прыпісвалася адвольна n = 20 або абодва асяроддзі адначасова. Табліца 1 звязвае названыя калекцыі са Славакіі, Даніі і Нідэрландаў з нумарамі ўзораў і паслядоўнасцей; самі гады і коды калекцый не вызначаюць месяцаў плоданашэння.
Злічаныя месцазнаходжанні
Польшча: Поўная картка grzyby.pl змяшчае 15 датаваных запісаў GRej, у тым ліку паўторныя пацвярджэнні месцазнаходжанняў. Гэта лакальныя назіранні ад 2006 да 2023 г., а не ацэнка колькасці па ўсёй Польшчы. Асобныя даты ахопліваюць кастрычнік, лістапад і 6 снежня 2020 г. каля Дэмбагуры. Wojewoda (2003), запіс T. cingulatum, апісвае збор з Батавіцкіх могілак у Кракаве за 1998 г. і прыводзіць кастрычнік; пад T. ramentaceum прыводзіць гістарычны запіс з Букавай пушчы (Puszcza Bukowa), са Шчэціна і наваколля. Даты публікацыі не пераносіліся на даты збору. Ваяводствы і дакладныя месцазнаходжанні без адпаведнага агульнага ідэнтыфікатара застаюцца ў захаваным запісе.
Замежны арэал: У аналізе за 2017 г. прысутнічаюць зборы MC03-252 з Гавешавай у Славакіі, дацкі неатып MC96-134, іншы дацкі збор MC96-170 з Борума і нідэрландскі MEN95210 з Boekweitveentje у Дрэнтэ. Кітайскі матэрыял уключае Сычуань (Кандзін/Гонггашань, 2700 м; Пінву, 2500 м) і Юньнань (Шангры-Ла/Вонгшуй, 3400 м). Індыйскі артыкул пералічвае таксама еўрапейскія краіны на падставе старэйшых прац; працытаваныя кнігі не зчытваліся аўтаматычна цалкам, і гэты спіс не прызнаваўся актуальным поўным арэалам распаўсюджання.
Доказ мікарызы з вярбой
Даследаваны корань: Leake et al. (2004) апісалі эктамікарызныя канчаткі каранёў вярбы паўзучай Salix repens у Newborough Warren. Даследаваліся тры групы ўзораў каранёў; аўтары назіралі мікарызныя чахлы і злучэнні рызаморфаў, а ўзоры мелі профіль ITS-RFLP тыпу I, які адпавядаў даследаванаму сімбіёнту Monotropa. Гэта доказ, які выходзіць за межы простага суседства дрэў. Табліца 5 прыводзіць для гэтых трох узораў Salix «nd» для mtLSU і рэгіёна ITS, таму гэта не азначае трох незалежна секвенаваных узораў. Від агульнага тыпу вызначаўся на аснове рэпрэзентатыўных паслядоўнасцей і параўнання з пладовымі целамі.
Кола партнёраў: Гэты прамы доказ датычыцца Salix repens. Запіс адносна Salix caprea у Millers Dale апісвае Monotropa, якая расце пад вярбой, і не змяшчае асобнага аналізу каранёў гэтай вярбы. У даных зафіксаваны даступны род Salix; дакладная назва вярбы паўзучай застаецца пры даследаванні. Гэтым метадам не былі пацверджаны ўсе віды верб ці іншыя дрэвы, згаданыя ў апісаннях месцапражыванняў.
Скрынінгавае даследаванне экстрактаў
Матэрыял 46/07: Otto (2017), дадатак A3, адзначае матэрыял T. cingulatum 46/07, пазначаны як «fr». Для метанольнага і этылацэтатнага экстрактаў табліца паказвае адсутнасць інгібіравання ў трох тэстах, пазначаных SEPTTR, PHYTIN і CLADCU. У слупку BOTRCI значыцца «n.t.» — не даследавалася; гэты запіс не замяняўся на адмоўны вынік. Гэта якасныя вынікі канкрэтнага матэрыялу і тэстаў, без высноў аб утылітарным або лекавым прымяненні віду.
Межы даных: З прачытанай вытрымкі не атрымалася высветліць канцэнтрацыі, колькасць паўтораў, лікавы канчатковы паказчык, а таксама нумар гербарнага ўзору і месца збору. Не расшыфраваны аўтаматычна ўсе коды тэставых арганізмаў. Прамы адрас рэпазіторыя вярнуў HTML-старонку замест PDF; захаванае прачытанне табліцы не з'яўляецца дэкларацыяй прачытання ўсёй дысертацыі. Вынікі не пераносіліся на прыгатаваныя пладовыя целы, бяспеку харчовых прадуктаў ці клінічную эфектыўнасць.
Склад матэрыялу з Каргіла — абсяг даследавання
Матэрыял і паўторнасці: Mayirnao і інш. (2025) сабралі спелыя пладовыя целы ў Драсе ў раёне Каргіл у верасні 2022 г., на вышыні 3276 м над узроўнем мора. Былі падзелены профіль метабалітаў ГХ–МС, вызначэнні сухой масы і малярныя суадносіны. Тры паўторнасці вызначэнняў не вызначаюць колькасці незалежных пладовых цел. Па падрабязныя пратаколы і малекулярную ідэнтыфікацыю аўтары адсылаюць да дадатку; дадатак не праглядаўся.
Значэнне працэнтаў: Табліца 1 падае працэнтны склад профілю метабалітаў ГХ–МС. Гэта не масавы працэнт кампанента ў пладовым целе. Захаваны кожны паказчык слупка T. cingulatum і зыходныя SD. Асобна застаюцца вынікі невыяўлення: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Невыяўленне дадзеным метадам не азначае абсалютнай адсутнасці рэчыва. Гідроксіглутаравая кіслата сустракаецца ў табліцы ў двух розных радках; адрозны колькасны запіс і невыяўленне не аб'ядноўваліся.
Антыаксідантныя тэсты: У раздзеле 3.10 аўтары падалі для T. cingulatum IC50 = 9,03 мг/мл у тэсце звязвання перакісу вадароду і 5,52 мг/мл у тэсце аднаўлення ферыцыяніду калію. Гэта вынікі тэстаў, а не пацвярджэнне лячэння, суплементацыі ці бяспекі спажывання. Асноўны тэкст не вырашае ўсіх дэталяў пратакола тэстаў; яны не замяняліся тэстам DPPH або іншым канчатковым пунктам. У анатацыі была вылучана аднаўленчая актыўнасць V. bombycina, нягледзячы на ніжэйшае значэнне, паказанае для T. cingulatum у раздзеле вынікаў.
Верыфікацыя прысутнасці — абсяг і абмежаванні
Матэрыял: Dokładny zapis źródłowy dla BG
Абсяг прагляду: Фрагменты крыніц.
Прагледжаны фрагмент крыніцы; поўны тэкст і метады не правяраліся.
Дата перагляду: 10.11.2026.
Абмежаванні: Абсяг вынікае з прыведзенай крыніцы; без пашырэння на іншыя тэрыторыі ці перыяды.
Абсяг апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Прававая аснова і абсяг ацэнкі
Правілы для лакацыі: Польшча
Аснова інфармацыі аб ахове
Від не пазначаны ў дадатках да пастановы аб відавой ахове грыбоў (Dz.U.2014/1408).
Аснова інфармацыі аб гандлі
Від не пазначаны ў пераліку допуску да абароту або вытворчасці грыбных прадуктаў (Dz.U.2026/258,załącznik1); гэта не з'яўляецца класіфікацыяй ядомасці.
Аналітычныя вынікі
Асобныя зыходныя аналітычныя вынікі
- Ізалейцын — доля ў профілі GC–MS
- Вынік вызначэння складае 0,59 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,14 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Лейцын — доля ў профілі GC–MS
- Вынік вызначэння складае 0,44 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,08 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Лізін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,65 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,04 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Фенілаланін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,58 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,15 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Трэанін — доля ў профілі GC–MS
- Вынік вызначэння складае 2,22 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,45 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Валін — доля ў профілі GC–MS
- Вынік вызначэння складае 1,12 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,09 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Аланін — доля ў профілі GC–MS
- Вынік вызначэння складае 2,64 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,59 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Аспарагін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,14 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,01 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Аспарагінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,26 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,07 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Глутамінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,98 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,35 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гліцын — доля ў профілі GC–MS
- Вынік вызначэння складае 2,11 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,78 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Пралін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,59 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,28 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Серын — доля ў профілі GC–MS
- Вынік вызначэння складае 1,0 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,14 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Ацэтыллізін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,21 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,03 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Эргатыянеін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,16 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,03 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гліцылпралін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,81 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,16 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- 5-оксапралін — доля ў профілі GC–MS
- Вынік вызначэння складае 7,95 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,04 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Адэназін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,27 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,1 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Этаналамін — доля ў профілі GC–MS
- Вынік вызначэння складае 1,36 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,28 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Метыладэназін — доля ў профілі GC–MS
- Вынік вызначэння складае 0,19 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,01 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Урацыл — доля ў профілі GC–MS
- Вынік вызначэння складае 0,59 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,22 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Мачавіна — доля ў профілі GC–MS
- Вынік вызначэння складае 1,88 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,12 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Урыдын — доля ў профілі GC–MS
- Вынік вызначэння складае 1,04 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,17 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Дэзоксігалактоза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,04 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,01 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Эрытроза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,2 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,05 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Фруктоза — доля ў профілі GC–MS
- Вынік вызначэння складае 1,55 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,41 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Фруктапіраноза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,42 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,06 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Талоза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,86 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,06 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Трэгалоза — доля ў профілі GC–MS
- Вынік вызначэння складае 18,67 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,69 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Ксілулоза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,25 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,08 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- α-манабіёза — доля ў профілі GC–MS
- Вынік вызначэння складае 0,28 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,01 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Дэзоксітэтронавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,22 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,04 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Глюконавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,55 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,26 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гліцэрынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,62 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,23 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гідраксіглутаравая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,29 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,1 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Рыбонавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,19 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,06 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Ксілонавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,52 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,11 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Эрытрытол — доля ў профілі GC–MS
- Вынік вызначэння складае 1,28 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,37 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Глюцытол — доля ў профілі GC–MS
- Вынік вызначэння складае 10,33 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 2,42 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гліцэрол — доля ў профілі GC–MS
- Вынік вызначэння складае 5,71 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,45 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Мезаэрытрытол — доля ў профілі GC–MS
- Вынік вызначэння складае 0,05 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,03 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Міаіназітол — доля ў профілі GC–MS
- Вынік вызначэння складае 1,05 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,2 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Рыбітол — доля ў профілі GC–MS
- Вынік вызначэння складае 2,36 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,18 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Мірысцінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,65 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,03 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Пальміцінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 3,7 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,66 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Стэарынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,8 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,41 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Алеінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 6,05 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,5 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Пальмітаэлаідынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,22 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,11 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Монаалеаілгліцэрол — доля ў профілі GC–MS
- Вынік вызначэння складае 1,47 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,14 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Манапальмітат гліцэролу — доля ў профілі GC–MS
- Вынік вызначэння складае 0,39 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,11 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Лінолевая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 5,3 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,08 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Азелаінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,12 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,34 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Стыгмастэрол — доля ў профілі GC–MS
- Вынік вызначэння складае 0,11 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,0 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Цытрынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,77 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,47 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Этылмалонавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,29 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,11 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Фумаравая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,15 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,13 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Гідраксімалонавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,34 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,04 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Малеінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 4,31 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,64 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Метылмалеінавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,07 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,02 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Метылбурштынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,23 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,04 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Піравінаградная кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,22 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,001 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Шчаўевая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,15 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,06 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Шыкімавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,37 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,1 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Бурштынавая кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 1,0 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,17 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Фосфарная кіслата — доля ў профілі GC–MS
- Вынік вызначэння складае 0,6 % профілю GC–MS. Масавая аснова не пазначана ў крыніцы. Нявызначанасць: 0,1 % профілю GC–MS (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: GC–MS пасля дэрыватызацыі MSTFA; працэнт складу профілю метабалітаў згодна з табліцай 1.[36] [37]
- Азот
- Вынік вызначэння складае 12,84 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,35 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: аналізатар CHNS.[36] [37]
- Сера
- Вынік вызначэння складае 1,02 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,17 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: аналізатар CHNS.[36] [37]
- Фосфар
- Вынік вызначэння складае 0,94 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,03 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: дэтальны метад для P не быў адназначна вызначаны ў прачытанай частцы метадаў.[36] [37]
- Натрый
- Вынік вызначэння складае 22,01 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 3,83 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: палымяная фотаметрыя.[36] [37]
- Калій
- Вынік вызначэння складае 31,2 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,75 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: палымяная фотаметрыя.[36] [37]
- Кальцый
- Вынік вызначэння складае 0,68 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,12 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Магній
- Вынік вызначэння складае 0,67 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 0,01 мг/г (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Алюміній
- Вынік вызначэння складае 39,07 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 3,26 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Медзь
- Вынік вызначэння складае 53,95 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 2,4 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Жалеза
- Вынік вызначэння складае 223,05 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 38,74 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Нікель
- Вынік вызначэння складае 22,41 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 3,93 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Хром
- Вынік вызначэння складае 30,92 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 2,94 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: ICP–MS.[36] [37]
- Марганец
- Вынік вызначэння складае 55,6 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 5,75 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: ICP–MS.[36] [37]
- Селен
- Вынік вызначэння складае 26,43 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 1,09 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: ICP–MS.[36] [37]
- Малібдэн
- Вынік вызначэння складае 61,22 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 5,91 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: ICP–MS.[36] [37]
- Цынк
- Вынік вызначэння складае 30,58 мікраграма на грам. Вынік адносіцца да сухой масы даследаванага матэрыялу. Нявызначанасць: 4,77 мікраграма на грам (стандартнае адхіленне). Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: атамна-абсарбцыйная спектраметрыя.[36] [37]
- Малярныя суадносіны OA/(Ca+Mg)
- Вынік вызначэння складае 0,4. Метад паводле крыніцы: малярныя суадносіны, прыведзеныя аўтарамі; OA — шчаўевая кіслата, PA — фіцінавая кіслата.[36] [37]
- Малярныя суадносіны PA/Fe
- Вынік вызначэння складае 0,16. Метад паводле крыніцы: малярныя суадносіны, прыведзеныя аўтарамі; OA — шчаўевая кіслата, PA — фіцінавая кіслата.[36] [37]
- Малярныя суадносіны PA/Ca
- Вынік вызначэння складае 0,13. Метад паводле крыніцы: малярныя суадносіны, прыведзеныя аўтарамі; OA — шчаўевая кіслата, PA — фіцінавая кіслата.[36] [37]
- Малярныя суадносіны PA/Zn
- Вынік вызначэння складае 6,33. Метад паводле крыніцы: малярныя суадносіны, прыведзеныя аўтарамі; OA — шчаўевая кіслата, PA — фіцінавая кіслата.[36] [37]
- Агульны бялок
- Вынік вызначэння складае 312 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: метад Брэдфарда.[36] [37]
- Агульныя фенолы — вызначэнне па Фоліну–Чакальтэу
- Вынік вызначэння складае 38,33 мг/г. Вынік адносіцца да сухой масы даследаванага матэрыялу. Статыстыка: сярэдняе. n = 3 (паўторы, указаныя ў крыніцы; біяхімічныя вымярэнні). Метад паводле крыніцы: метад Фоліна–Чакальтэу; калібрант не пазначаны адназначна ў прачытанай частцы метадаў.[36] [37]
Экалагічныя даследаванні
Дадатковыя крыніцы распаўсюджвання
Балгарыя: Assyov (2023) апісаў месцазнаходжанне ў Бараўцы ў гарах Рыла: 8 кастрычніка 2016 г. і 13 лістапада 2020 г., экзэмпляры SOMF29917 і SOMF30896. Яны раслі пад Salix caprea і Betula pendula у маладым мяшаным хвойным лесе; прысутнасць бярозы ў месцапражыванні не з'яўляецца доказам мікарызы з бярозай. Два месяцы збораў не вызначаюць поўнага сезона краіны. Гістарычны балгарскі запіс назвы T. ramentaceum ад 1955 г. аўтар прызнаў няпэўным, без знойдзенага экзэмпляра.
Славакія: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), с. 28, прыводзіць збор S. Glejdura пад вербамі ў арбарэтуме Барова гара ў Зволене, 320 м над узроўнем мора, 11 кастрычніка 1995 г. Год указвае падсумаванне спіса знаходак ад 1995 г. Прагледжаны запіс пацвярджае кастрычніцкае назіранне, а не ўвесь славацкі сезон. Назва ў крыніцы захавала гістарычны запіс аўтарства.
Вялікабрытанія: Norfolk Fungus Study Group публікуе 20 запісаў з 17 месцазнаходжанняў у 1988–2025 гадах. Датаваныя запісы прыпадаюць на кастрычнік–снежань; Felthorpe Woods мае збор ад 22 снежня 1988 г. Рэестр уключае сярод іншага Whitlingham Marsh, Horsey Warren, Thetford і Holt. Сувязі з вярбой ці хвояй запісаны як назіранае суседства, без аўтаматычнага пацвярджэння каранёвага партнёра. Даныя з Норфалка не абагульняліся на поўны сезон усёй Вялікабрытаніі.
Нідэрланды: Атлас NDFF вызначае від як звычайны на падставе верыфікаваных назіранняў 2004–2023 гадоў. Асобна ён прыводзіць катэгорыю ўразлівы з чырвонага спіса 2008; частата і катэгорыя пагрозы апісваюць розныя пытанні. Ён паказвае на бедны гумусам пясок і сувязь з Salix repens. Графік феналогіі змадэляваны паводле назіранняў 2000–2021; непрачытаныя лікавыя значэнні з яго не перапісваліся.
Месцапражыванне і сустракальнасць
Пацверджаны арэал распаўсюджання
Усе тэрыторыі пацверджаны ў захаваных зыходных даных.
| Краіна | Рэгіёны і месцазнаходжанні | Утварэнне пладовых цел | Крыніцы |
|---|---|---|---|
| Балгарыя | Рэгіёны не вызначаны ў захаваных даных | X–XI — мінімальны абсяг назіранняў |
|
| Кітай | Сычуань; Юньнань (Yunnan) | VIII–X — мінімальны абсяг назіранняў |
|
| Чэхія | Пльзенскі край; Усцецкі край | VII–XI |
|
| Данія | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Вялікабрытанія | Рэгіёны не вызначаны ў захаваных даных | X–XII — мінімальны абсяг назіранняў |
|
| Індыя | Ладакх; Драс, Ладакх; Каргіл, Ладакх | VIII — мінімальны абсяг назіранняў | |
| Нідэрланды | Рэгіёны не вызначаны ў захаваных даных | Не вызначана |
|
| Польшча | Лодзьскае ваяводства; Малапольскае ваяводства; Падляскае ваяводства; Заходнепаморскае ваяводства; Паморскае ваяводства; Семяновіцы-Слёнске; Любускае ваяводства | X–XII — мінімальны абсяг назіранняў |
|
| Славакія | Рэгіёны не вызначаны ў захаваных даных | X — мінімальны абсяг назіранняў |
|
Крыніцы
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- ŚredniQ i odchylenie standardowe próby
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka