
Jedlý

Vyžaduje úpravu

Nastavte polohu, aby sa zobrazili údaje pre váš región.
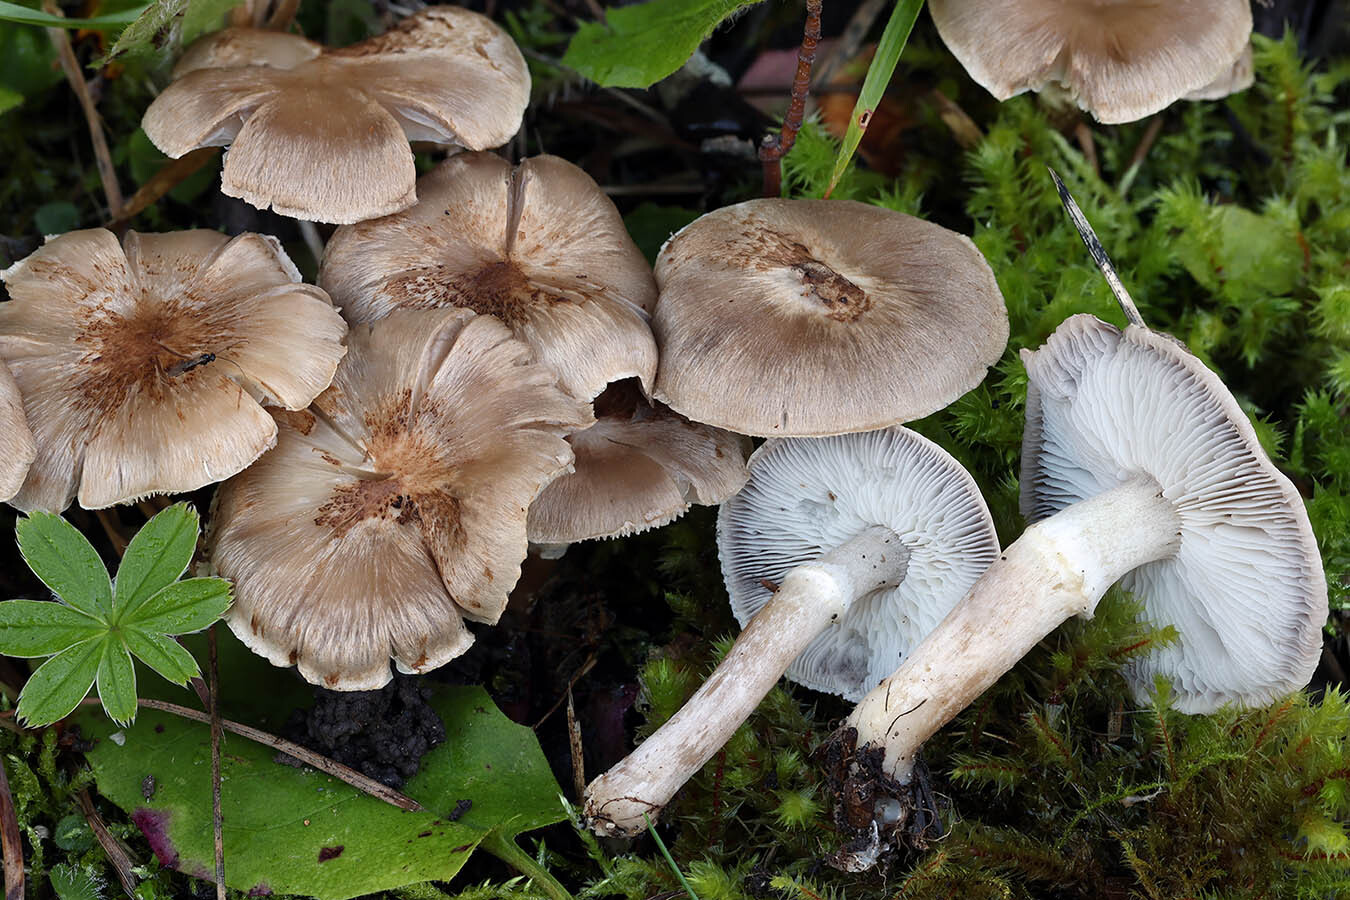
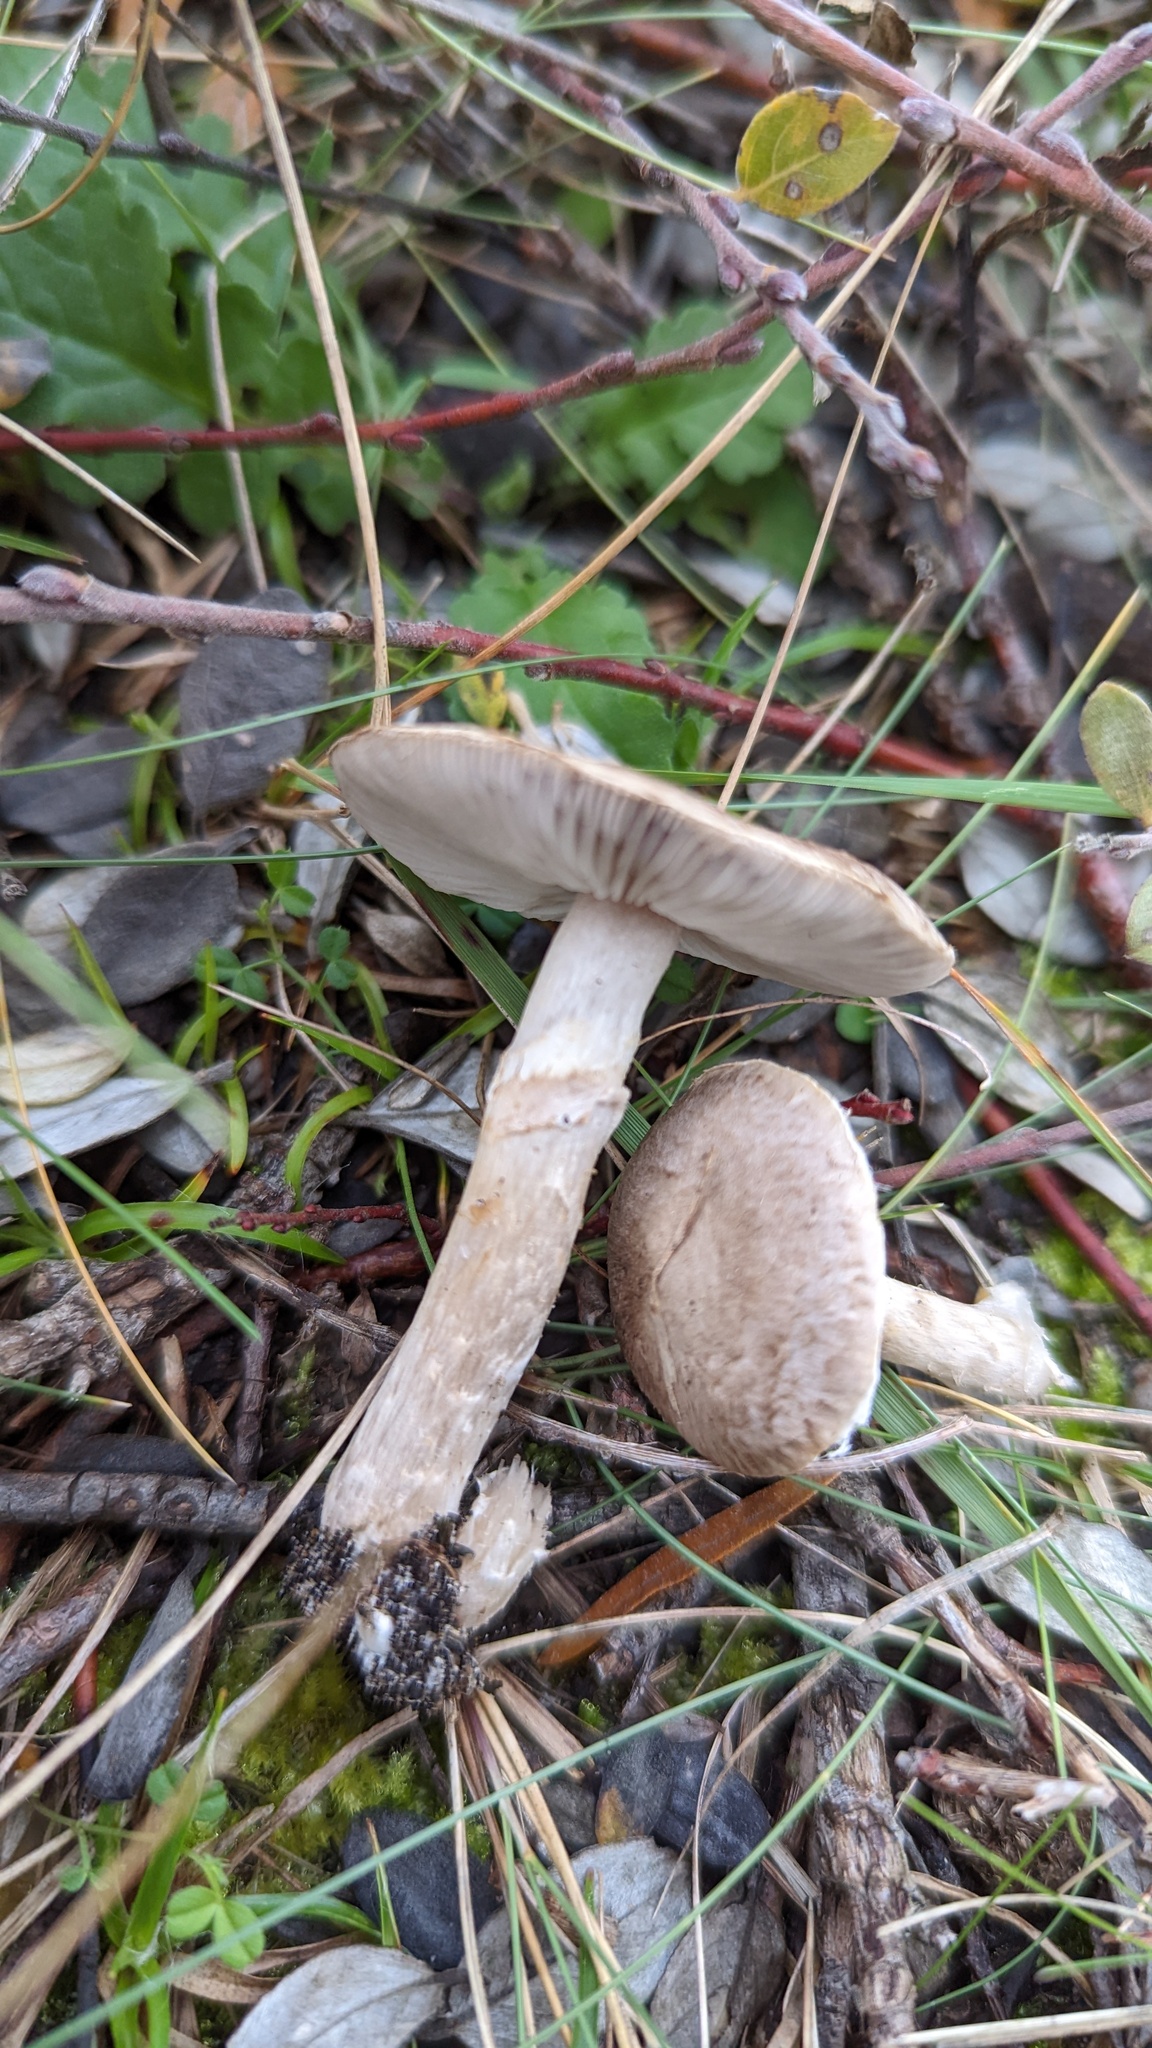
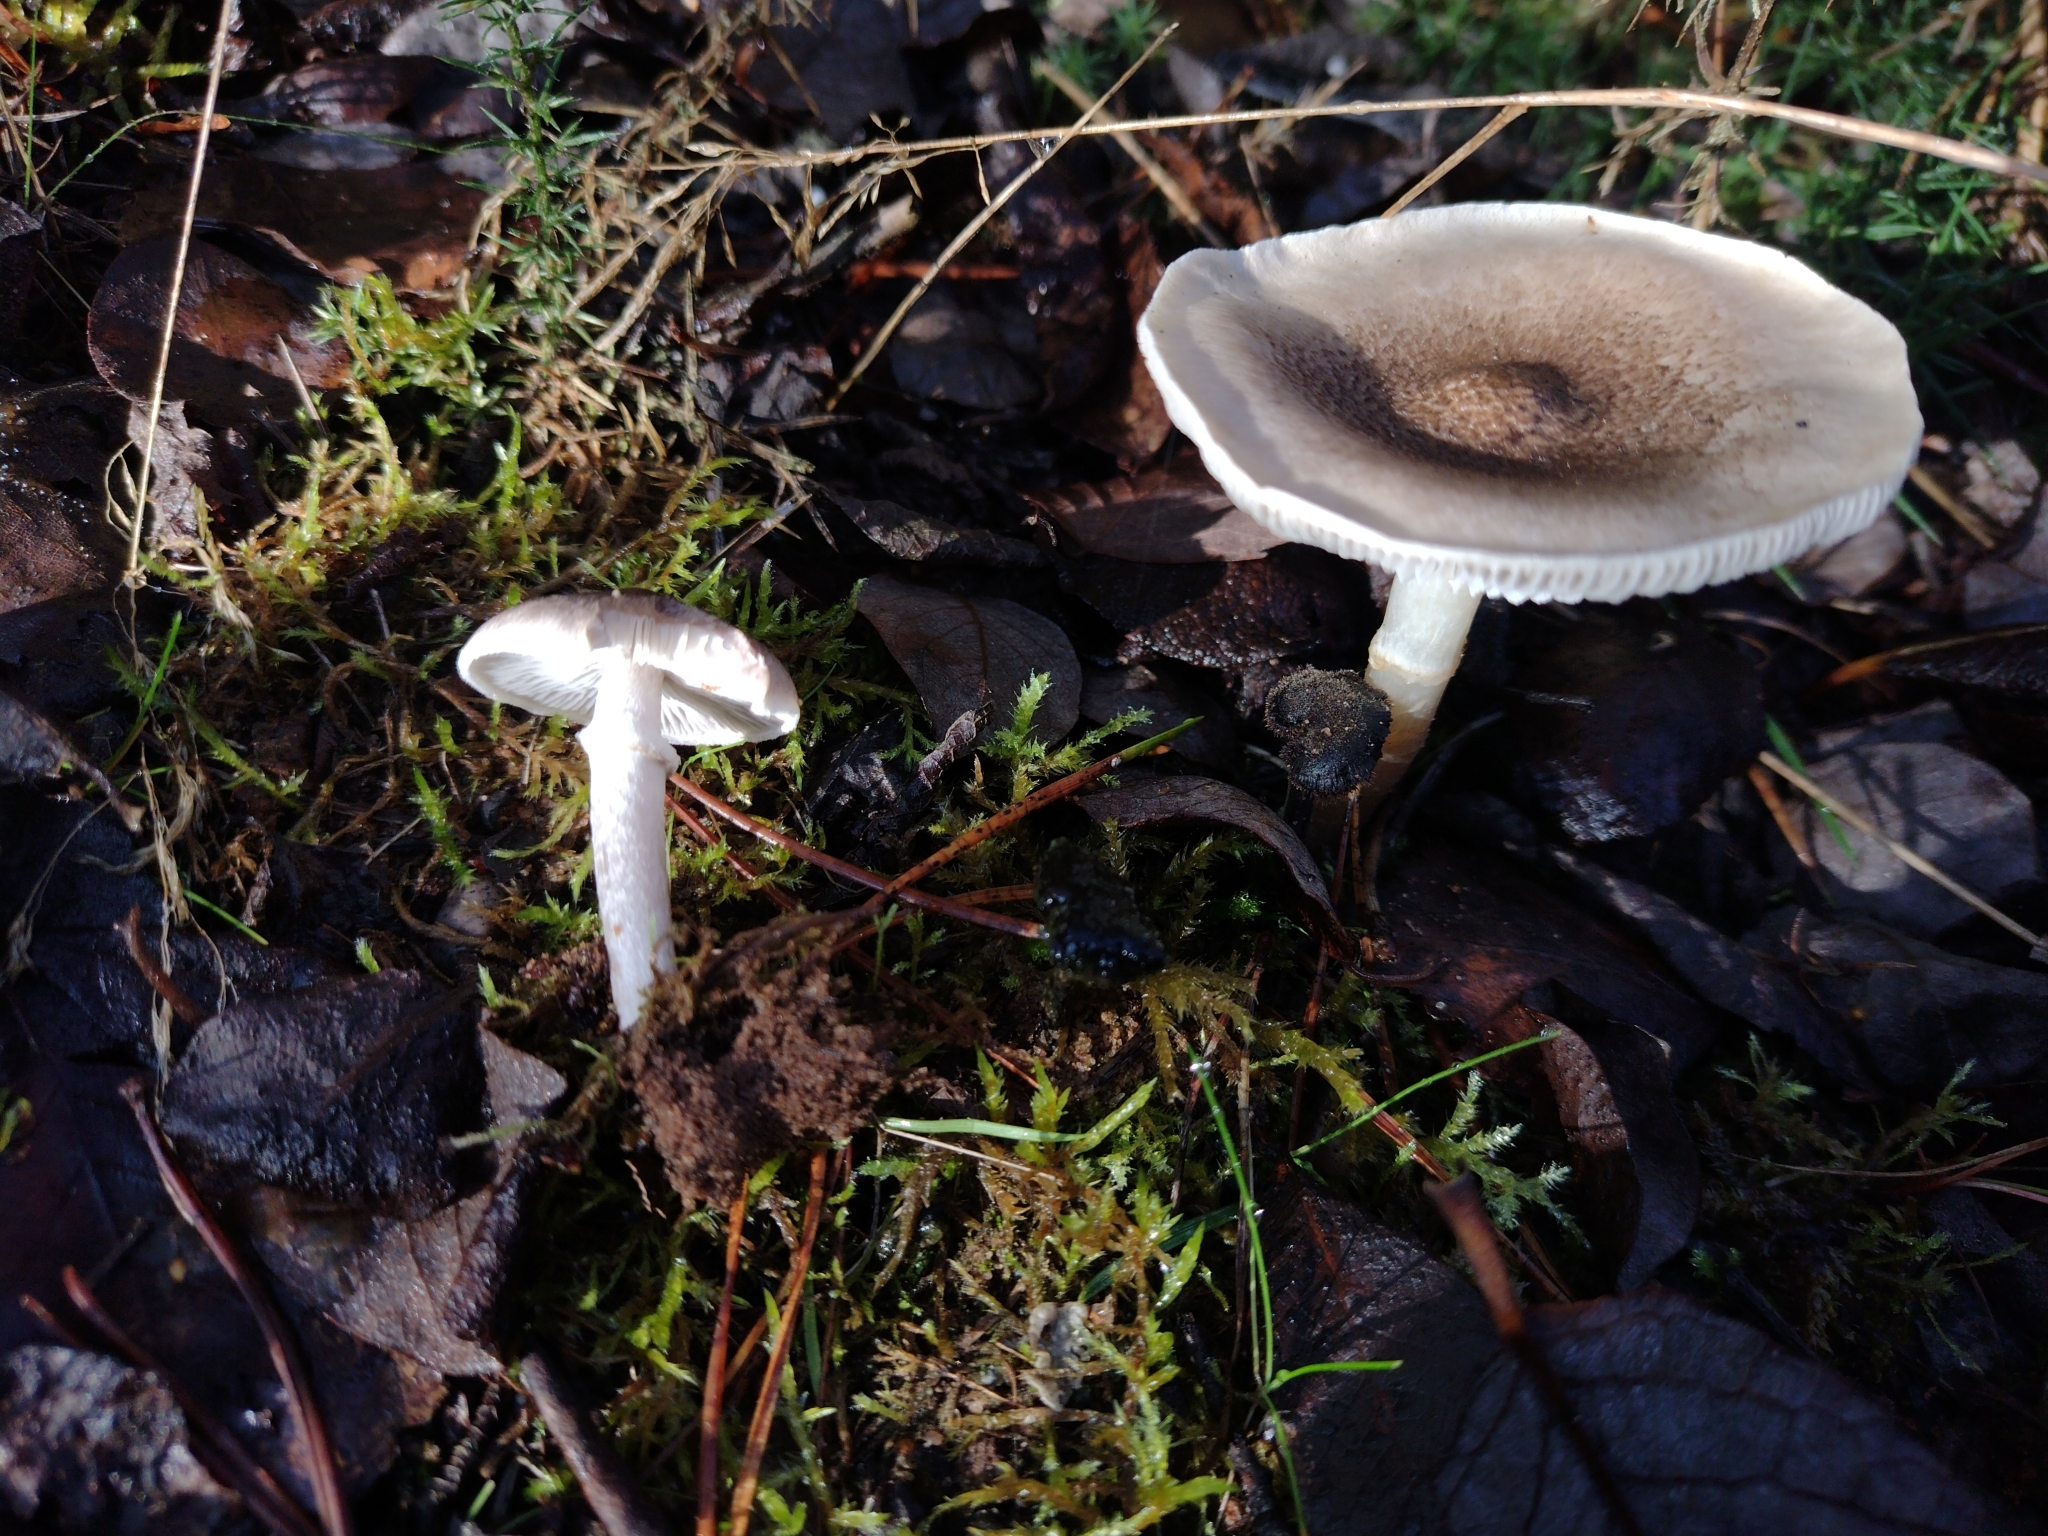
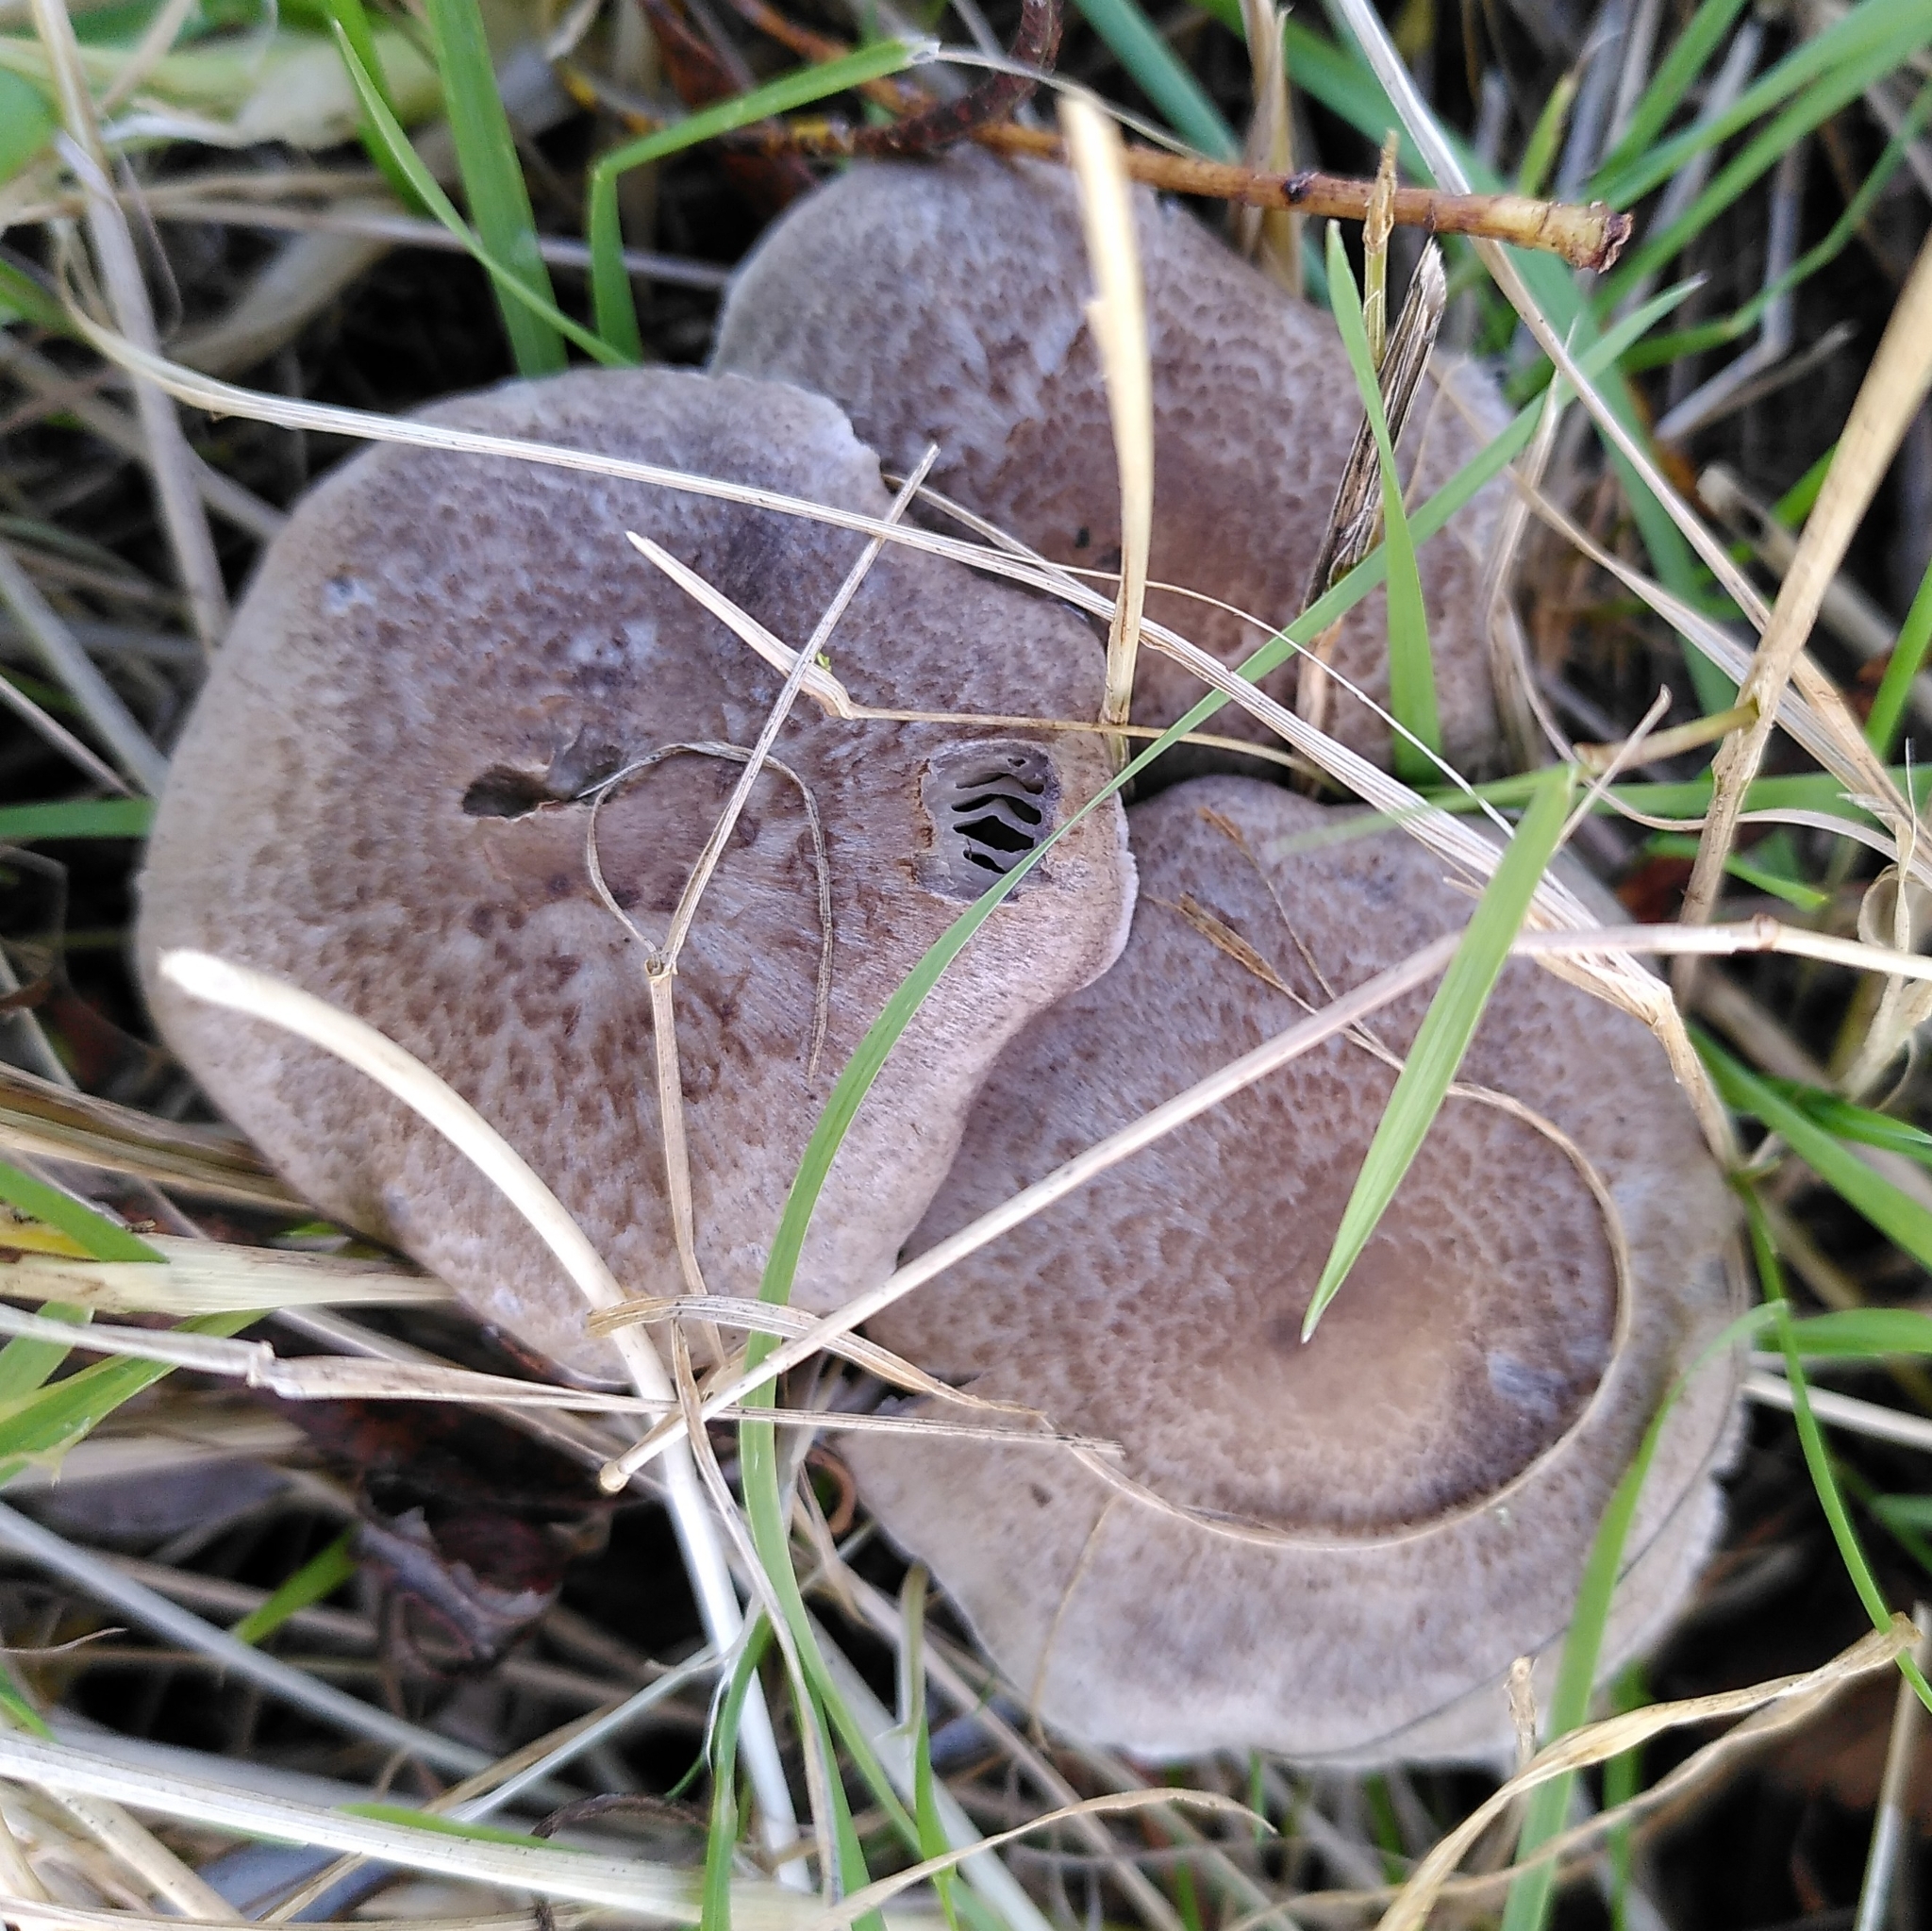
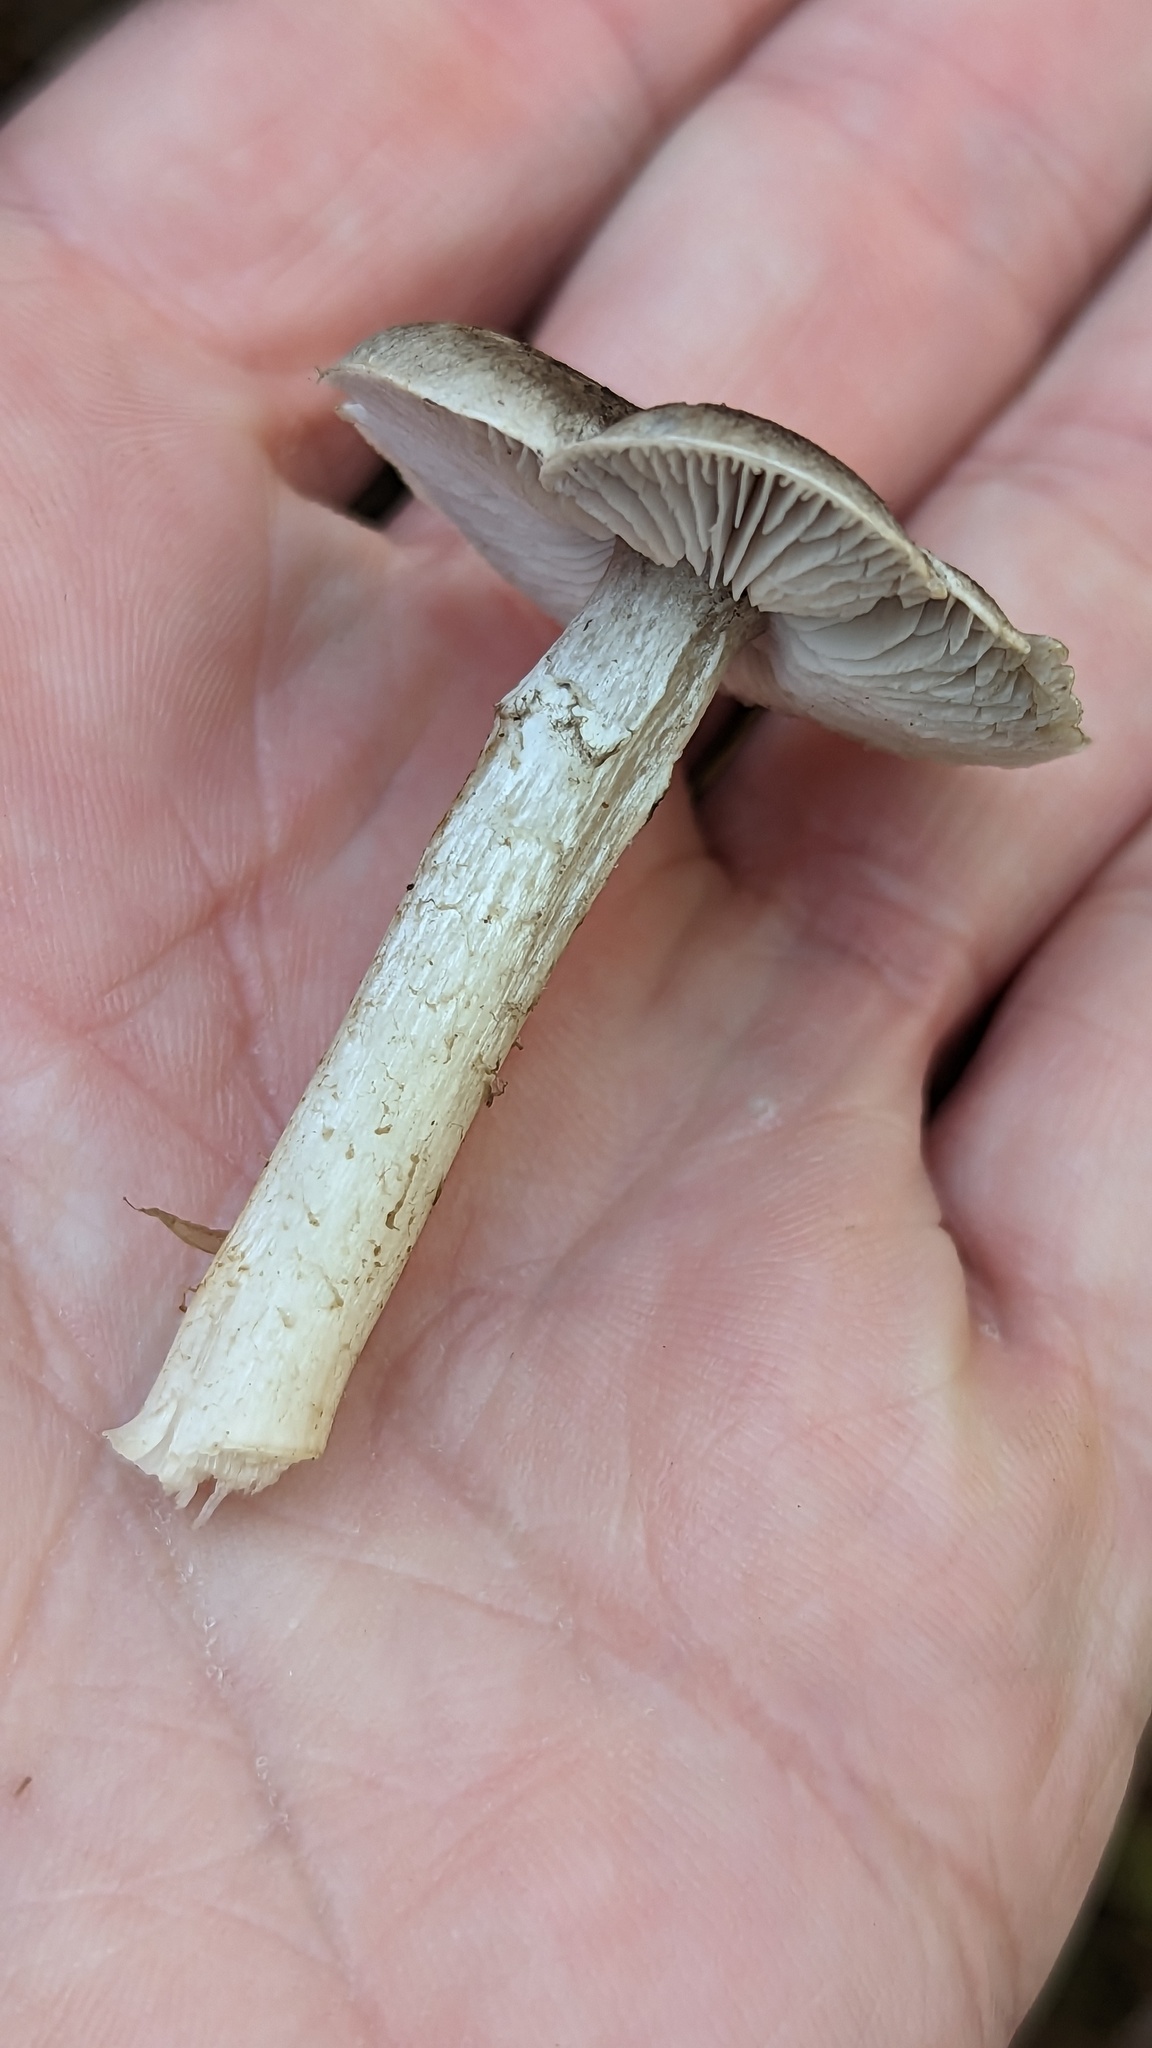
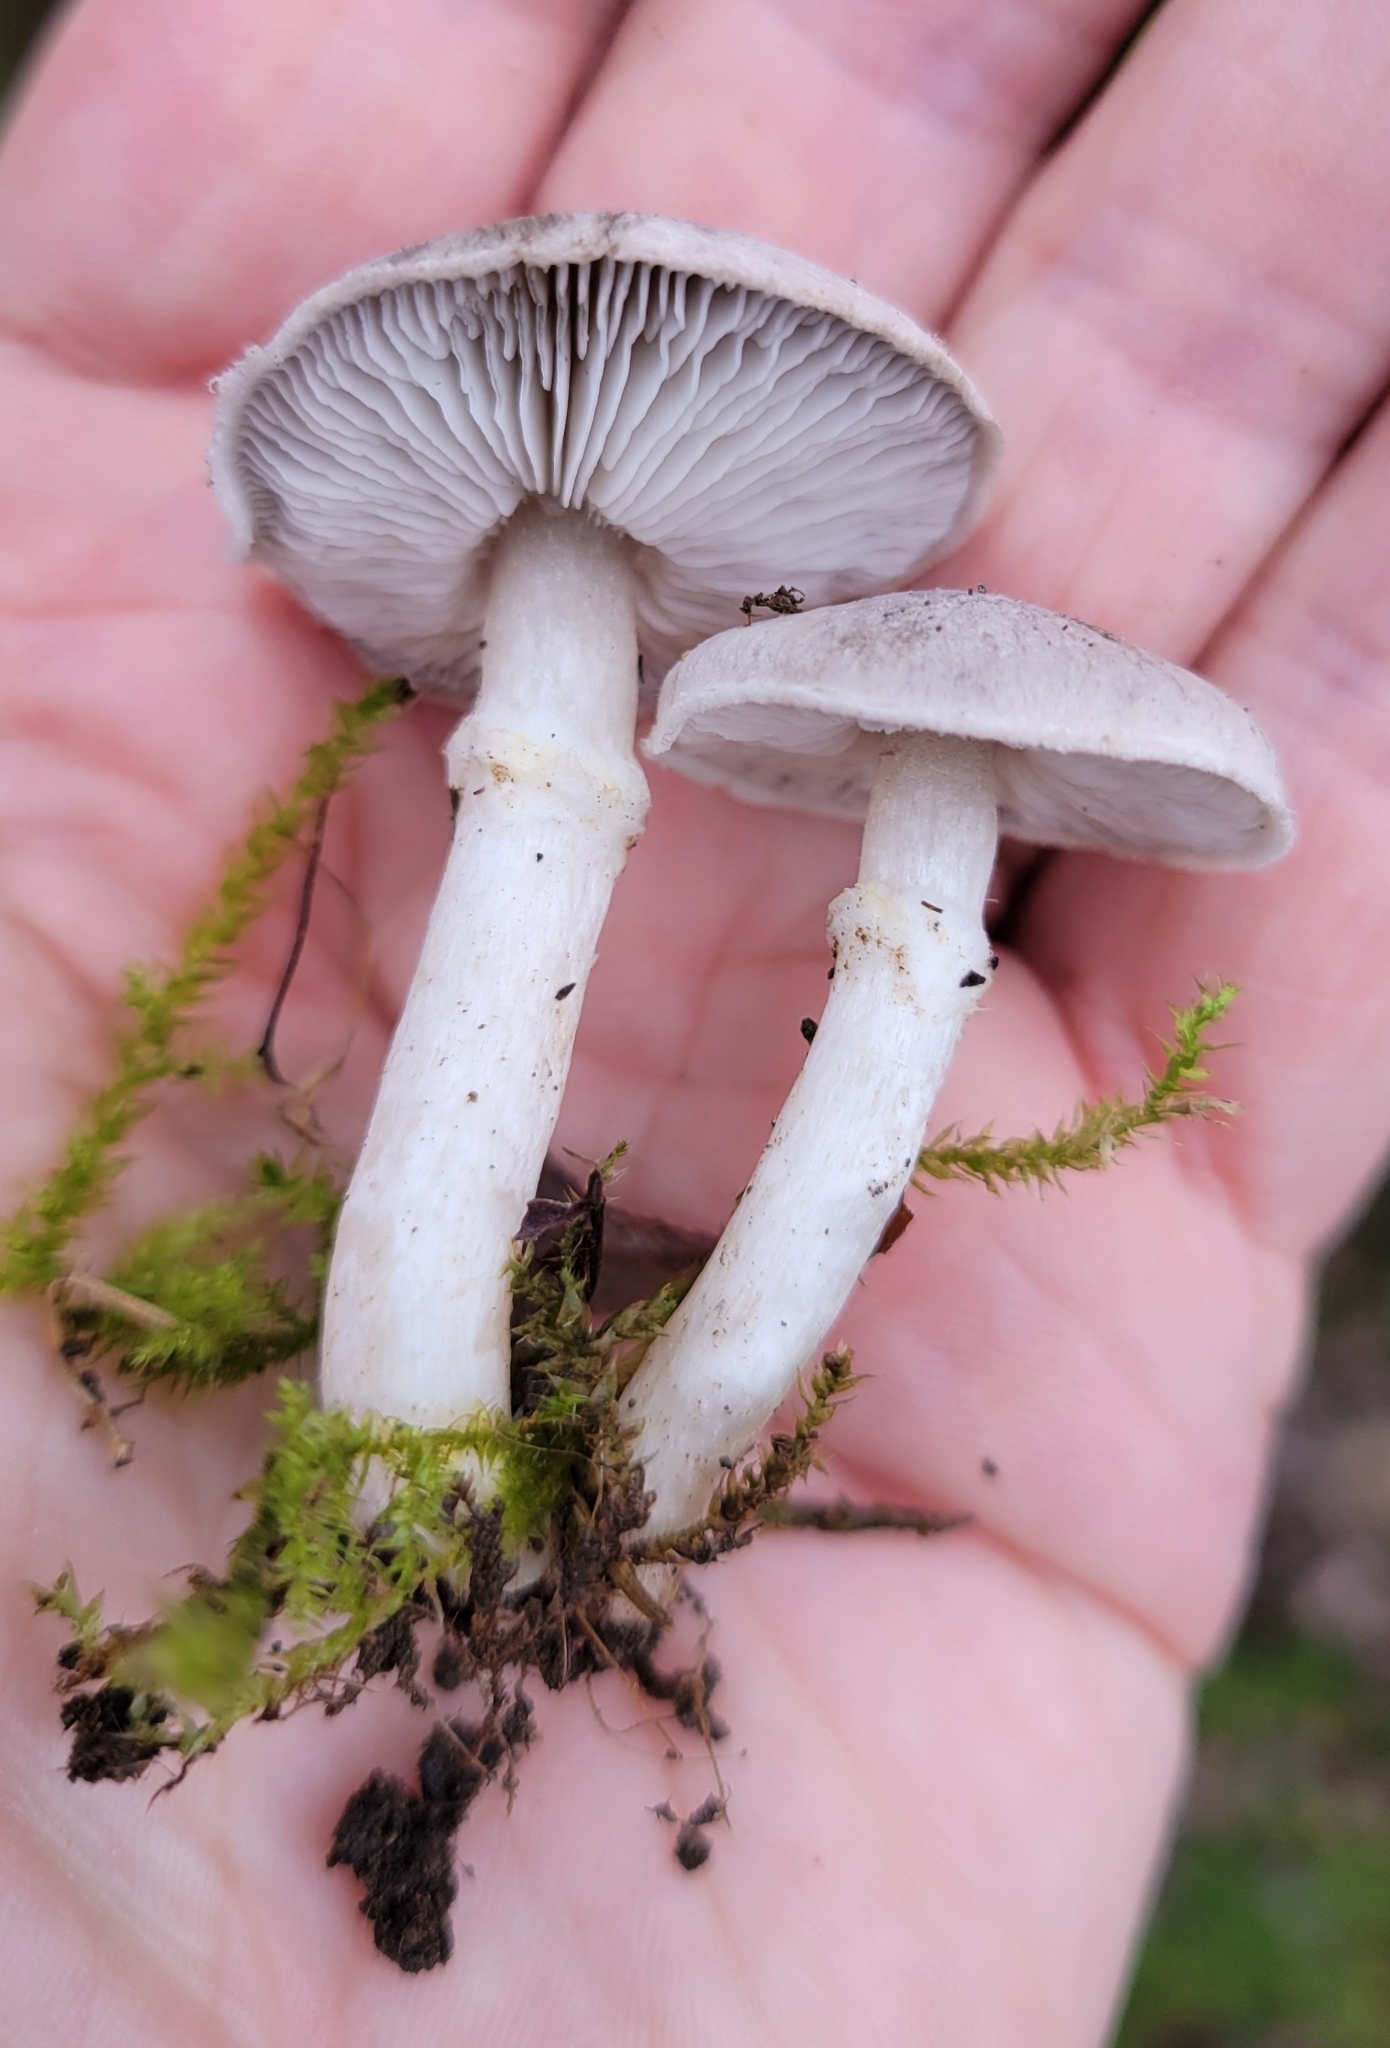
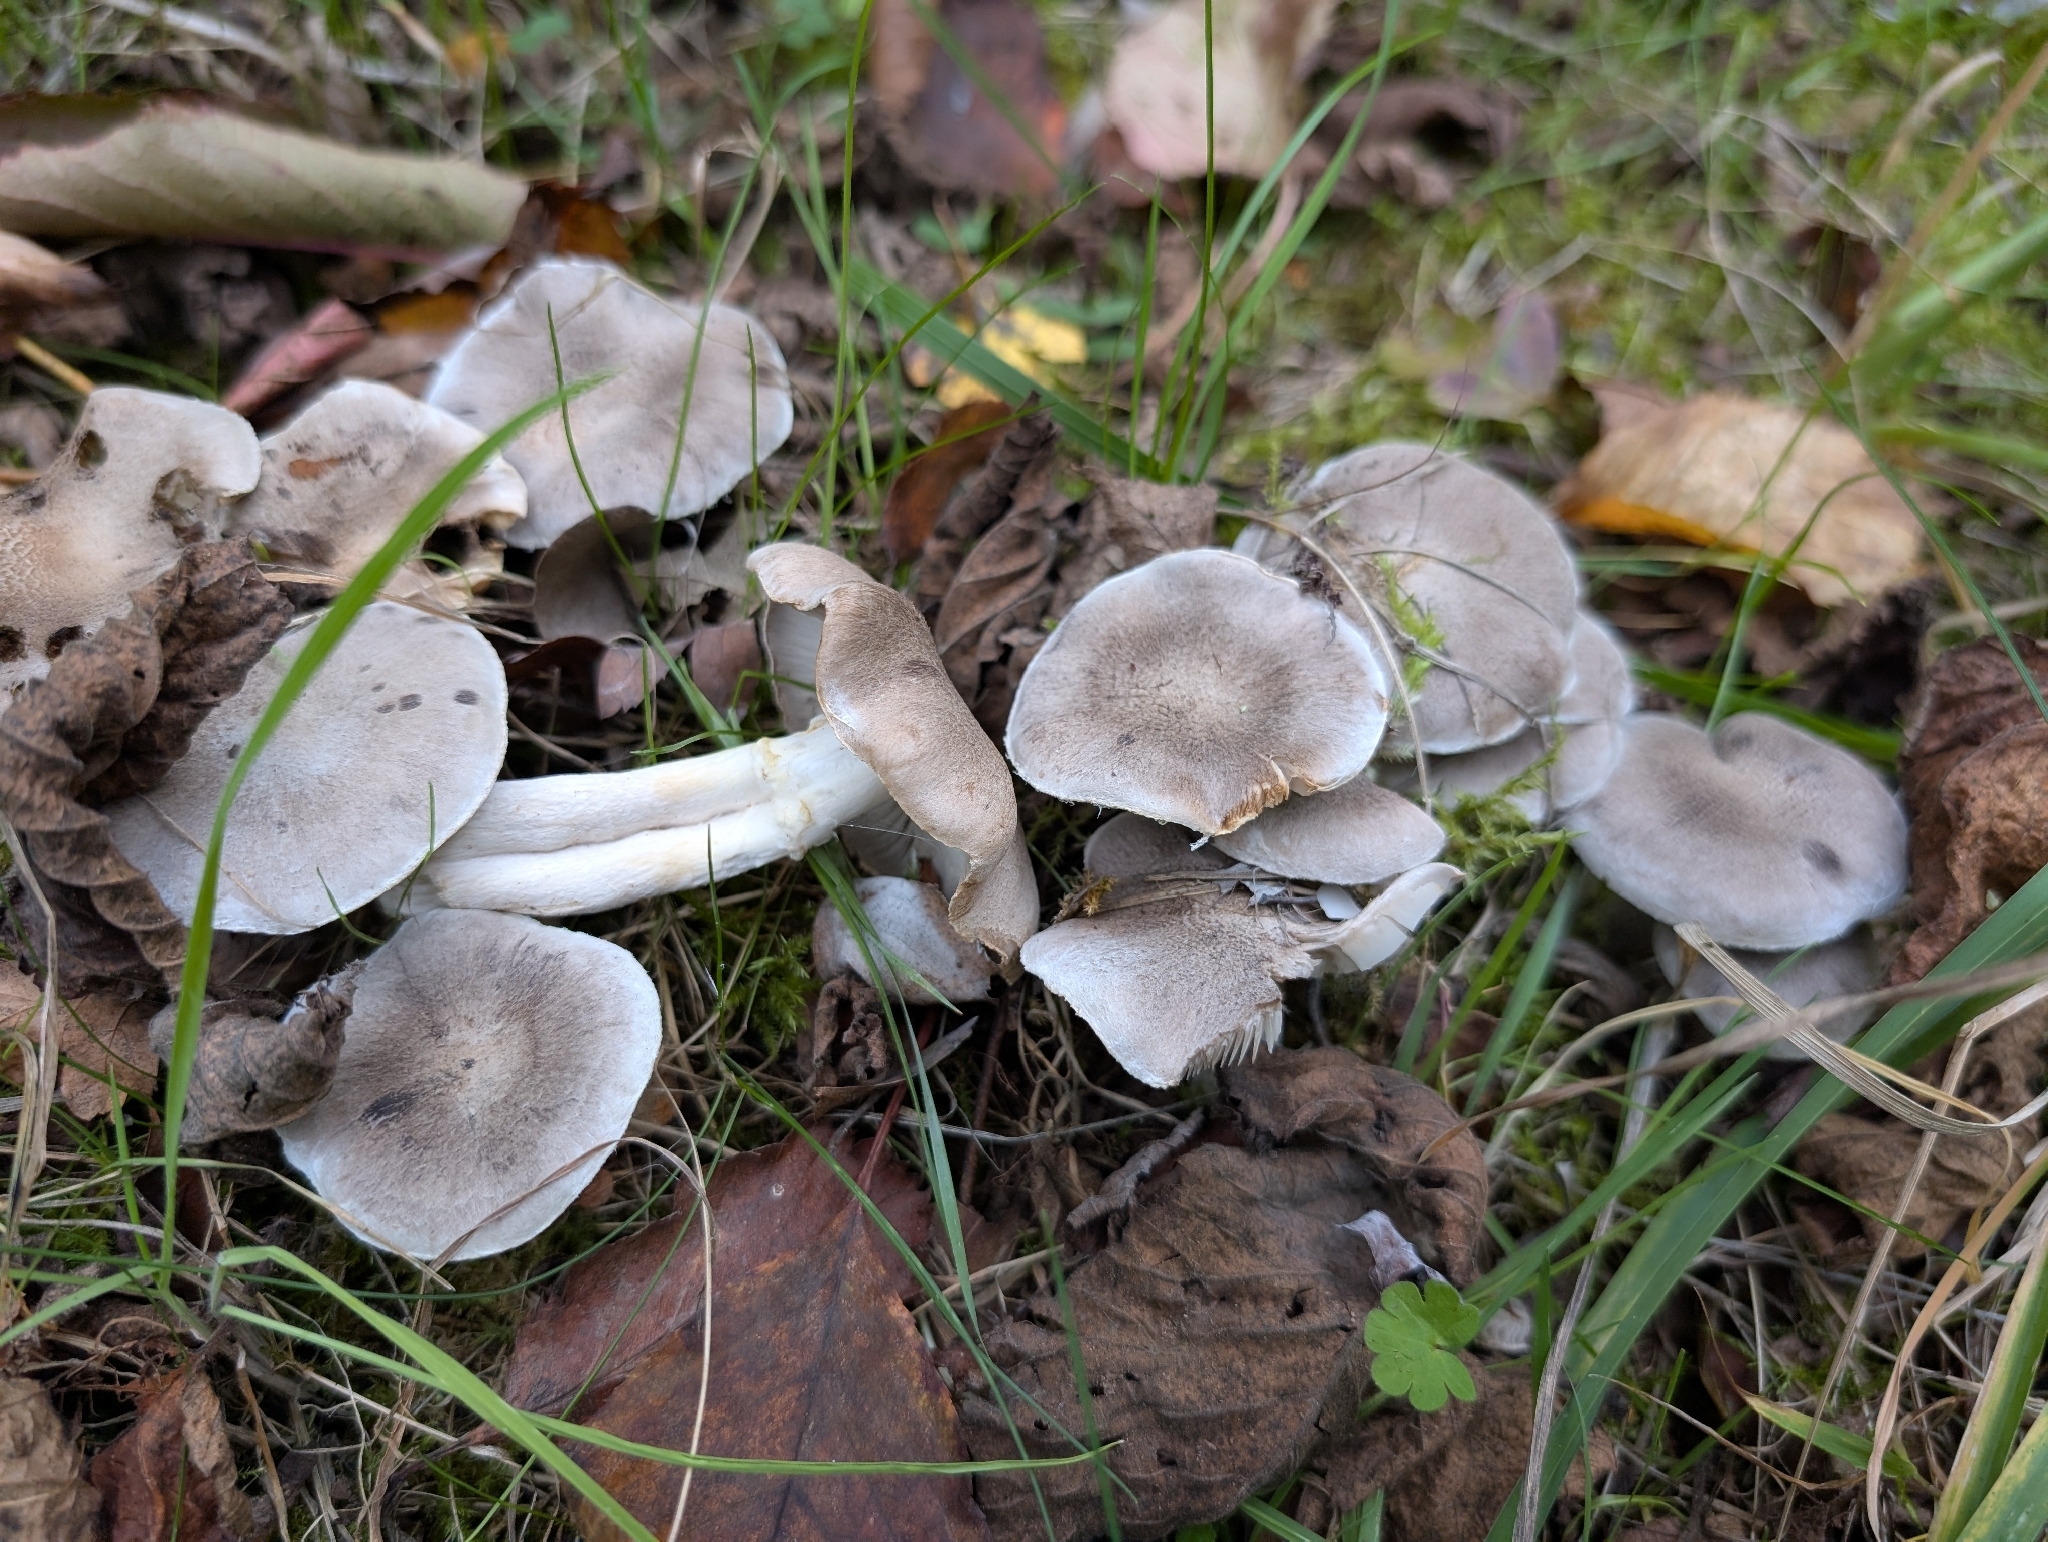


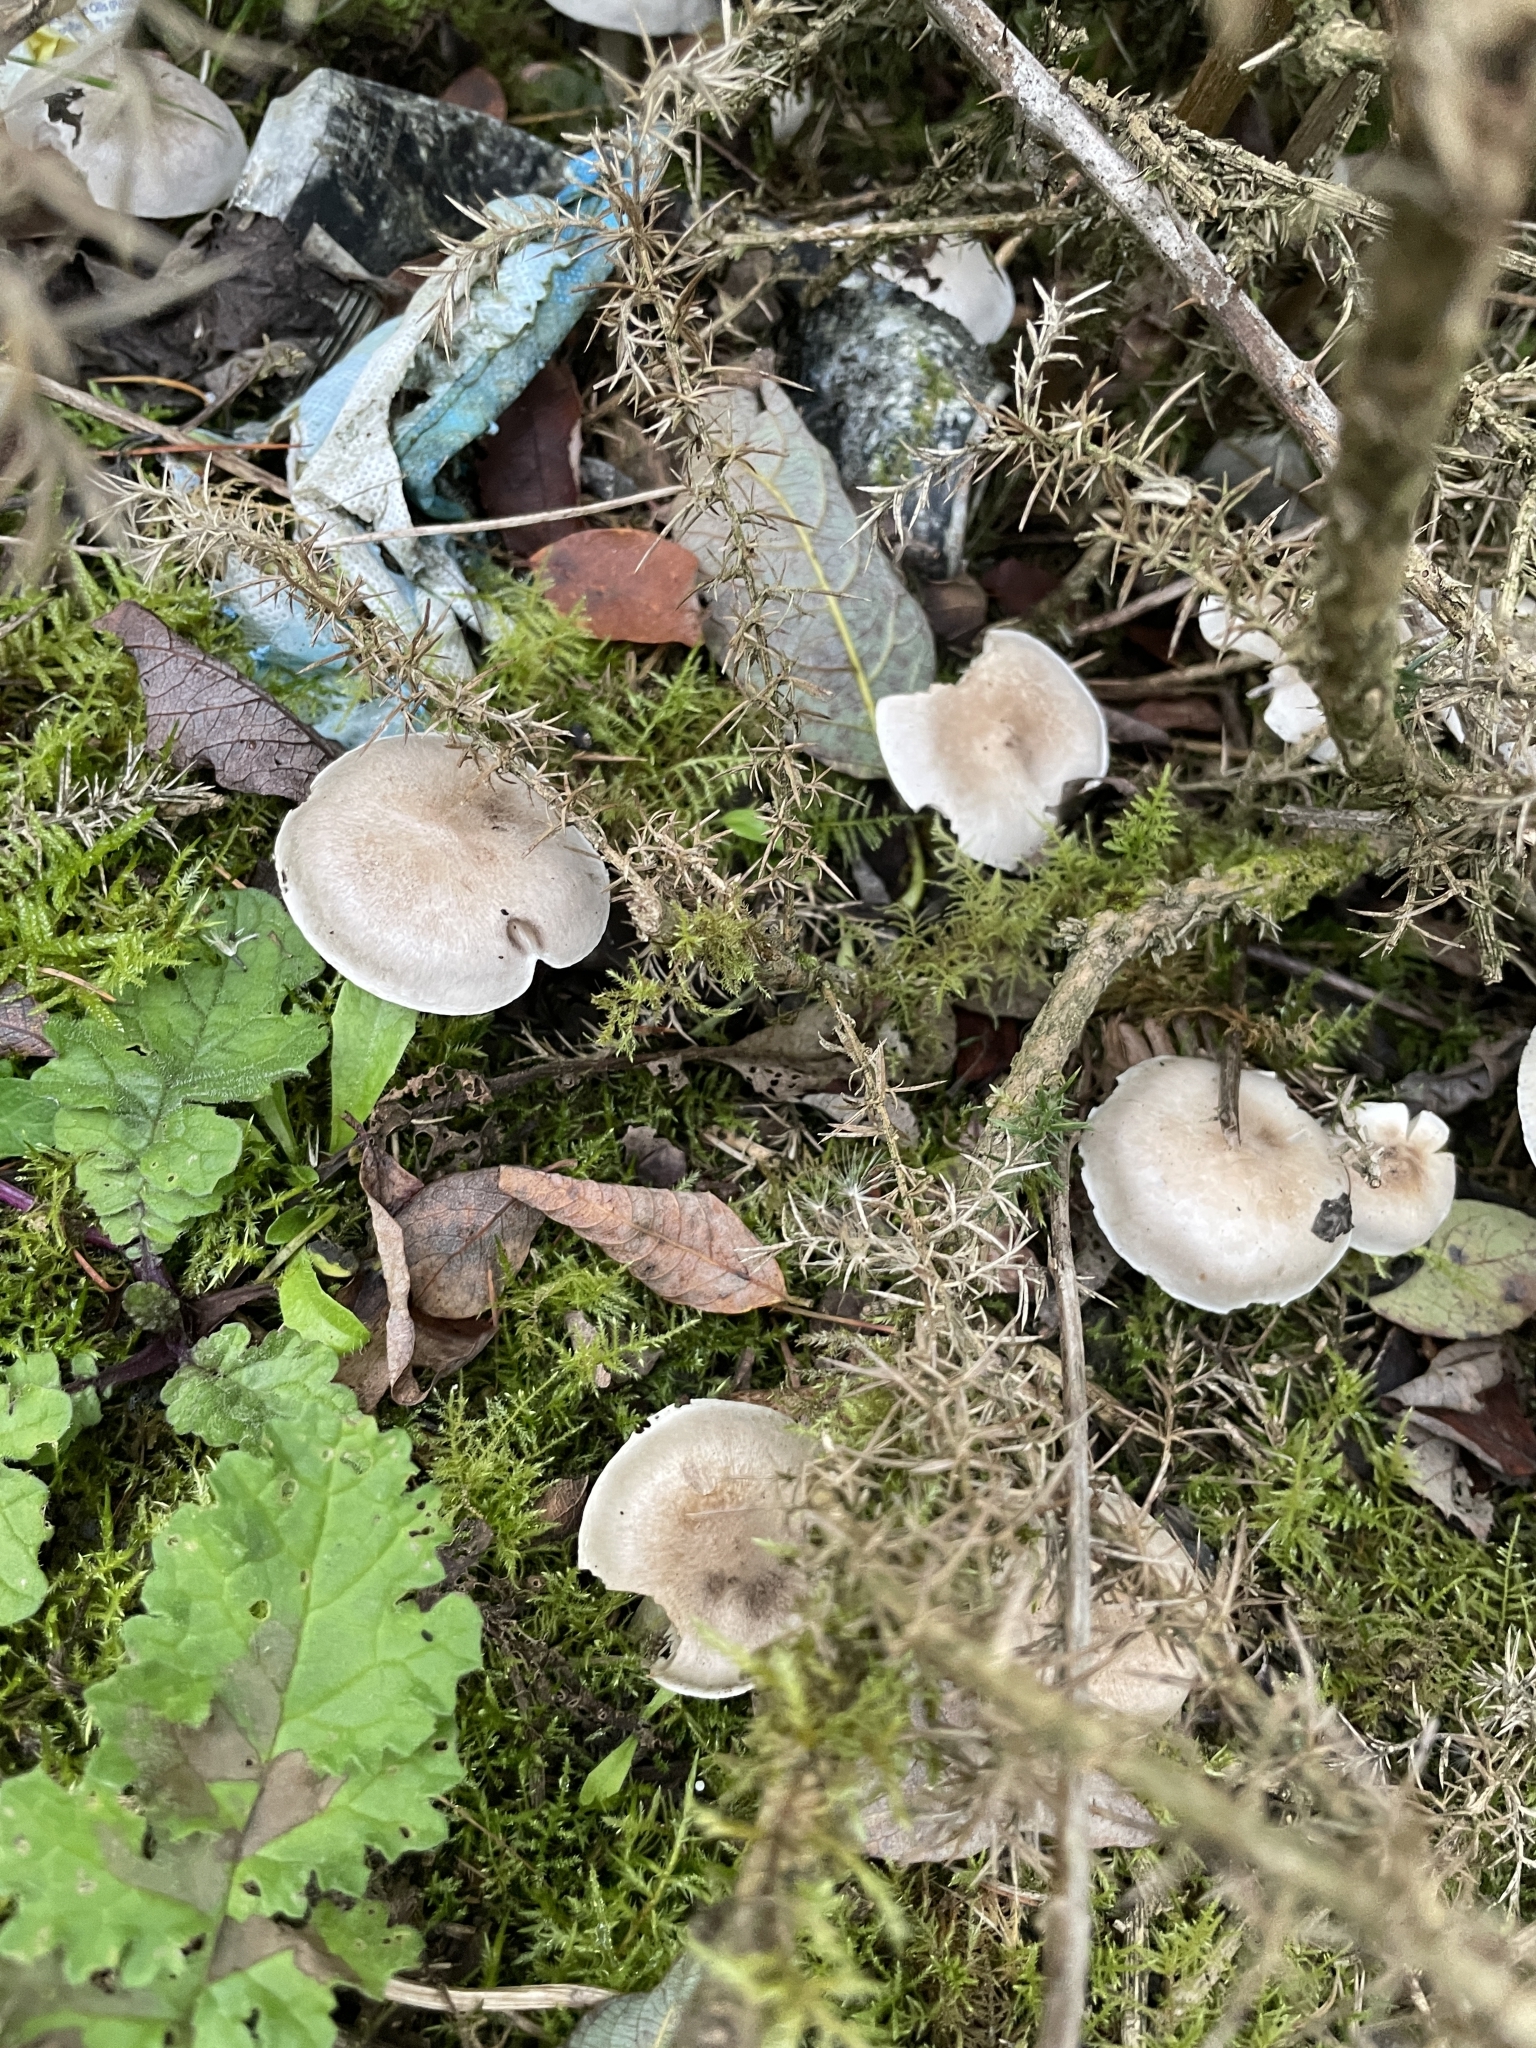
Čírovka vŕbová (Tricholoma cingulatum) je menšia až stredne veľká lupenitá huba z čeľade čírovkovitých. Vyznačuje sa plstnatým až jemne šupinkatým, sivohnedým až popolavosivým klobúkom a svetlými hustými lupeňmi. Jej najtypickejším znakom je prítomnosť výrazného vláknitého prsteňa alebo prstencovitej zóny na hlúbiku, čo je v rode Tricholoma zriedkavé. Rastie výhradne v mykoríznej symbióze s vŕbami na vlhkých stanovištiach. Dužina má jemnú múčnu vôňu.
Rozpoznávanie, biotop a najdôležitejšie rozdiely.
Hubár
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobúk, hlúbik.
Klobúk
- Tvar klobúka
- Tvar klobúka: polguľovitý alebo zvonkovitý.
Tvar klobúka: plochý.
Tvar klobúka: vypuklý.
Tvar klobúka: vypuklý (sploštený profil). - Povrch klobúka
- Povrch klobúka: suchý.
- Pokryv klobúka
- Pokryv klobúka: plstnatý.
Pokryv klobúka: šupinatá (jemné šupiny).
Pokryv klobúka: šupinatá (jemné šupiny, sivohnedý pokryv).
Pokryv klobúka: šupinatá (jemné šupiny, olivové).
Pokryv klobúka: šupinatá (hnedé).
Pokryv klobúka: šupinatá (sivohnedý pokryv). - Lesk povrchu klobúka
- Lesk povrchu klobúka: matný.
- Farba klobúka
- Farba klobúka: sivastý.
Farba klobúka: biely.
Farba klobúka: sivá (svetlý odtieň).
Farba klobúka: sivohnedý. - Usporiadanie okraja
- Usporiadanie okraja: podvinutý.
pri mladých plodniciach: Usporiadanie okraja: zahnutý dovnútra. - Obrys okraja klobúka
- Obrys okraja klobúka: zvlnený.
- Priemer klobúka
- Priemer klobúka je 30–60 mm.
- Stred klobúka
- Stred klobúka: s výrazným hrboľom (tupý hrbolček, niekedy).
Stred klobúka: s výrazným hrboľom. - Čiastočný závoj
- pri mladých plodniciach: Čiastočný závoj: prítomný (od okraja klobúka k hlúbiku, belavá, pavučinovitá).
Spodná strana klobúka
- Typ hymenoforu
- Typ hymenoforu: lupene.
Lupene pri hlúbiku
- Pripojenie hymenoforu k hlúbiku
- Pripojenie hymenoforu k hlúbiku: prirastený k hlúbiku (lupene).
Pripojenie hymenoforu k hlúbiku: voľný od hlúbika (lupene). - Profil hymenoforu pri hlúbiku
- Profil hymenoforu pri hlúbiku: vykrojený pri hlúbiku (lupene).
- Zbiehavosť hymenoforu na hlúbik
- Zbiehavosť hymenoforu na hlúbik: zbiehavý zúbkom (lupene).
- Prirodzená farba povrchu lupeňa
- Prirodzená farba povrchu lupeňa: belavá.
Prirodzená farba povrchu lupeňa: sivý.
pri zrelých plodniciach: Prirodzená farba povrchu lupeňa: Žltkastá.
Prirodzená farba povrchu lupeňa: belavá.
Prirodzená farba povrchu lupeňa: krémový. - Rozostup lupeňov
- Rozostup lupeňov: stredne husté.
Rozostup lupeňov: blízko pri sebe. - Výška lupeňov
- Výška lupeňov: 2–4 mm.
- Prítomnosť krátkych lupeňov
- Prítomnosť krátkych lupeňov: prítomný.
- Počet dĺžkových radov lupienkov
- Počet dĺžkových radov lupienkov: 2–3.
Hlúbik a báza
- Tvar hlúbika
- Tvar hlúbika: valcovitý.
- Farba hlúbika
- Farba hlúbika: belavá alebo sivohnedý.
Farba hlúbika: biely alebo belavá.
Farba hlúbika: biely. - Pokryv povrchu hlúbika
- Pokryv povrchu hlúbika: Plstnatá a vláknitá.
v hornej časti hlúbika: Pokryv povrchu hlúbika: vločkatá alebo šupinatá. - Vnútro hlúbika
- Vnútro hlúbika: plný.
- Dĺžka hlúbika
- Dĺžka hlúbika: 30–80 mm.
- Priemer hlúbika
- Priemer hlúbika: 5–15 mm.
Prsteň
- Prítomnosť prsteňa
- Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný.
Prítomnosť prsteňa: prítomný. - Stavba materiálu prsteňa
- Stavba materiálu prsteňa: vatovitý.
Stavba materiálu prsteňa: vatovitý.
Stavba materiálu prsteňa: vatovitý. - Poloha prsteňa
- Poloha prsteňa: v hornej časti hlúbika.
Poloha prsteňa: v hornej časti hlúbika. - Farba prsteňa
- Farba prsteňa: belavá.
Farba prsteňa: biely.
Dužina
- Farba dužiny
- Farba dužiny: belavá.
Farba dužiny: biely alebo krémový. - Pevnosť dužiny
- Pevnosť dužiny: pevný.
- Štruktúra dužiny
- Štruktúra dužiny: vláknitý (dužina hlúbika).
- Vôňa dužiny
- Vôňa dužiny: múčny (celá plodnica).
Vôňa dužiny: príjemný (dužina). - Hrúbka dužiny klobúka
- Hrúbka dužiny klobúka: 2–3 mm.
- Chuťové tóny
- Chuťové tóny: múčny.
Kde a kedy rastie
- Stanovište
- Stanovište: les bližšie neurčeného typu.
Stanovište: ihličnatý les alebo zmiešaný les.
Stanovište: listnatý les, zmiešaný les, lužný les, okraj lesa, kroviny, ruderálne alebo mestské stanovište, lúka alebo ovocný sad. - Substrát
- Substrát: pôda.
- Spôsob rastu plodníc
- Spôsob rastu plodníc: v skupinách.
Spôsob rastu plodníc: jednotlivo alebo roztrúsené skupiny.
Spôsob rastu plodníc: v skupinách, roztrúsené skupiny alebo v kruhoch. - Frekvencia výskytu
- Obdobie rastu
- Plodnice sa objavujú od októbra do decembra (pozorované obdobie, roky pozorovania: 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023, mesiace pozorovania: 10, 11, 12).
- Oblasť výskytu
- Potwierdzono występowanie w Polsce.
Jedlosť a kuchyňa
- Jedlosť
- Jedlý
- Vyžadovaná úprava
- Vyžaduje úpravu
Právo
- Ochrana
- Nie je uvedený v poľskom zozname chránených druhov húb.
- Predaj
- V Poľsku nie je uvedený v zozname húb povolených na predaj.
FAQ
S akými drevinami tvorí čírovka vŕbová mykorízu?
Tvorí mykoríznu symbiózu takmer výlučne s rôznymi druhmi vŕb, napríklad s vŕbou popolavou, bielou či rakytou.
Aké stanovištia tento druh preferuje?
Preferuje vlhké stanovištia, ako sú brehy riek a rybníkov, lužné lesy, podmáčané lúky a zatopené štrkoviská.
V akom období sa objavujú plodnice čírovky vŕbovej?
Plodnice rastú na jeseň, najčastejšie od konca augusta do novembra, s vrcholom v septembri a októbri.
Aký je najvýraznejší poznávací znak tejto čírovky?
Jej typickým znakom je prítomnosť vláknitého prsteňa na hlúbiku, ktorý je u väčšiny iných číroviek neprítomný.
Je čírovka vŕbová jedlá huba?
V atlasoch sa uvádza ako jedlá, no novšie práce neodporúčajú skupinu T. terreum. Tieto odlišné názory nedokazujú jej toxicitu, no pre nízku kvalitu sa zbiera zriedka.
Vyžaduje čírovka vŕbová pred konzumáciou varenie?
Áno, surové plodnice môžu spôsobiť žalúdočné ťažkosti, preto je nutná dôkladná tepelná úprava.
Prečo sa neodporúča jej bežný zber neskúsenými hubármi?
Pre vysoké riziko zámeny s inými, nejedlými alebo jedovatými sivými druhmi rodu Tricholoma.
Existuje tradičné ľudové využitie tohto druhu v liečiteľstve?
Nie, v ľudovom liečiteľstve ani v remeslách sa táto huba historicky nikdy nevyužívala.
Ako sa čírovka vŕbová uplatňuje v ochrane prírody?
Dokladá prítomnosť vŕb, no sama o sebe nedokazuje nenarušený biotop, keďže rastie aj na kamenistých a človekom ovplyvnených stanovištiach. Slúži aj pri mapovaní diverzity.
Aké uplatnenie má tento druh vo vedeckej praxi?
Slúži ako študijný a porovnávací materiál v mykologických herbároch pre taxonomický výskum rodu Tricholoma.
Nadšenec
Názvy a história
- Platný národný názov
- Gąska wierzbowa
- Platný taxonomický názov
- Tricholoma cingulatum
- Ostatné názvy
- gąska obuta
Pozorovania doma
Výtrusný prach
- Potrebný materiál
- čerstvý, zrelý klobúk, list papiera, pohár alebo miska, voda
- Čas
- 2–24 h
- Postup
- Položte klobúk spodnou stranou na papier.
- Pridajte kvapku vody na vrch a prikryte.
- Po 2–24 hodinách nadvihnite klobúk a prezrite si výtrusný prach.
Čo hľadať
- Farba výtrusného prachu
- Farba výtrusného prachu: biely.
Pod mikroskopom
- Potrebný materiál
- svetelný mikroskop, podložné a krycie sklíčko, ihla, voda, výtrusy z výtrusného prachu
- Postup
- Ihlicou preneste malé množstvo výtrusného prachu na sklíčko.
- Pridajte kvapku vody, prikryte krycím sklíčkom a pozorujte výtrusy.
Čo hľadať
- Tvar výtrusu
- Tvar výtrusu: elipsoidný. Tvar výtrusu: valcovitý. Tvar výtrusu: elipsoidný (široký). Tvar výtrusu: elipsoidný. Tvar výtrusu: elipsoidný (pretiahnutý).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozmery výtrusu
- Dĺžka 4–7,2 µm, šírka 2,5–4,2 µm.
- Rozmery výtrusu
- Dĺžka 5,2 µm, šírka 3,1 µm.
Rozmery porovnávajte až po kalibrácii mierky mikroskopu.
Ekológia a rozšírenie
- Mykorízni partneri
- Všeobecná väzba druhu: Mykorízni partneri: Salix repens (všeobecný zoznam partnerov).
- Spôsob výživy
- Spôsob výživy: ektomykorízny.
Nekulinárske využitie
Čírovka vŕbová nemá žiadne tradičné uplatnenie v remeselnej výrobe ani v ľudovom liečiteľstve. Jej nekulinárske využitie sa sústreďuje do sféry ekologickej a vedecko-výskumnej praxe.
V environmentálnom manažmente a lesníctve slúži ako bioindikátor ekologickej stability a zachovalosti vŕbových brehových porastov a nivných spoločenstiev. Jej prítomnosť na revitalizovaných stanovištiach, ako sú rekultivované štrkoviská a brehy regulovaných tokov, poukazuje na úspešné etablovanie mykoríznych sietí v pôde.
Ďalšie uplatnenie nachádza v akademickom a vzdelávacom prostredí. Sušené položky v mykologických herbároch a fungáriách slúžia ako porovnávací materiál pri štúdiu diverzity rodu Tricholoma a pri pedagogických ukážkach morfologických adaptácií u klobúkatých húb. Využíva sa tiež pri mapovaní mykoflóry v rámci chránených území.
História a kultúra
V kultúrnej histórii a ľudových tradíciách čírovka vŕbová nezanechala hlbšiu stopu, keďže vidiecke obyvateľstvo ju v minulosti nerozlišovalo od iných sivých lesných húb. Druh bol prvýkrát vedecky podchytený v európskej mykologickej literatúre 19. storočia, kde upútal pozornosť bádateľov prítomnosťou prsteňa, ktorý je v rámci rodu číroviek neobvyklým morfologickým znakom.
Formálne bol druh opísaný a zaradený do systému významnými európskymi taxonómami, pričom historické zmienky sa viažu k floristickým súpisom vŕbových porastov.
V modernej environmentálnej mykológii sa spája s výskytom vŕb, hoci samotný nález druhu nemožno pokladať za dôkaz zachovaného a nenarušeného mokraďového biotopu. Molekulárne štúdie totiž potvrdili jej výskyt aj na antropogénne ovplyvnených, plytkých kamenistých pôdach pozdĺž ciest v blízkosti banských areálov. V niektorých stredoeurópskych regiónoch je evidovaná v červených zoznamoch ako vzácnejší špecializovaný mykorízny symbiont vŕb.
Jedlosť a bezpečnosť
Čírovka vŕbová je v mykologických atlasoch tradične označovaná ako jedlá huba, hoci novšie odborné práce neodporúčajú konzumáciu druhov z okruhu čírovky zemnej (Tricholoma terreum). Ide však o odlišné hodnotenia, ktoré nedokazujú toxicitu samotnej čírovky vŕbovej. Jej kulinárska hodnota a praktický význam sú navyše veľmi nízke. Dužina má múčnu vôňu aj chuť a menšie plodnice neposkytujú výdatný úžitok, preto ju zbiera len málokto. Z hľadiska bezpečnosti je nevyhnutná dostatočná a dôkladná tepelná úprava. Surové alebo nedostatočne tepelne spracované plodnice môžu vyvolať podráždenie žalúdka a tráviace ťažkosti, preto sa odporúča ich pred kuchynským použitím povariť a vodu zliať. Staré a premočené plodnice sa nesmú konzumovať pre riziko bakteriálneho rozkladu. U neskúsených hubárov hrozí zámena s jedovatými sivými čírovkami, napríklad s čírovkou tigrovanou, pre čo sa bežný zber neodporúča a druh nemá žiadne komerčné využitie.
Biotop a výskyt
Čírovka vŕbová sa vyskytuje v miernom pásme Európy a Ázie, pričom jej výskyt je prísne viazaný na prítomnosť hostiteľských drevín. Je to striktne mykorízny druh, ktorý tvorí symbiotické väzby takmer výlučne s rôznymi druhmi vŕb (Salix), napríklad s vŕbou popolavou, vŕbou bielou, vŕbou košikárskou či vŕbou rakytou.
Typickými biotopmi sú vlhké brehové porasty riek, potokov a rybníkov, podmáčané vŕbové kroviny, slatinné lúky, lužné lesy, vlhké priekopy pozdĺž ciest, ako aj sekundárne stanovištia, akými sú zatopené štrkoviská, pieskovne a lomy s pionierskymi náletmi vŕb. Uprednostňuje vlhké, hlinité až piesčité pôdy.
Plodnice sa tvoria v jesennom období, zvyčajne od konca augusta do novembra, s vrcholom fruktifikácie v septembri a októbri. V strednej a západnej Európe je výskyt pomerne lokálny a roztrúsený, v závislosti od dostupnosti zachovaných vlhkých vŕbových biotopov, pričom v niektorých regiónoch patrí k zriedkavým druhom.
Zdroje
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Bádateľ
Jedlosť a kuchyňa
Zdrojové zistenia: jedlosť, konzumácia a využitie
- Jedlosť
- Jedlý — zdroj určenia
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Kuchynské využitie: V atlasoch býva označovaná ako jedlá; aktuálna skupinová výhrada zachovaná v Bádateľovi.
- Požadovaná úprava
- Vyžaduje úpravu
FAQ gatunku: obróbka termiczna · literal_statements/0 a/1: požiadavka na tepelnú úpravu vo FAQ. Ide o záznam redakčného obsahu, nie výsledok toxikologického experimentu.
Vedecké názvy a taxonómia
- Platný vedecký názov
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[29] [32]
Ekológia a rozšírenie
- Frekvencia výskytu
- Holandsko: Frekvencia výskytu: hojný. [17]
Laboratórna diagnostika
Štruktúrované údaje
Bazídiá
Hymeniálne cystidy
Ostatné laboratórne znaky
- Dĺžka
- Dĺžka: 35–150 µm. [8]
- Hrúbka steny
- Hrúbka steny: 1 µm (približná hodnota). [8]
Hrúbka steny: 0,5–1 µm (približná hodnota). [8] - Hrúbka steny — kvalitatívne posúdenie
- Hrúbka steny — kvalitatívne posúdenie: tenkostenný. [33]
Hrúbka steny — kvalitatívne posúdenie: tenkostenný. [8]
Hrúbka steny — kvalitatívne posúdenie: hrubostenný (mierne). [8] - Stavba subhyménia
- Stavba subhyménia: vláknitá. [8]
Pokožka klobúka
- Optický vzhľad hyf pokožky klobúka
- Optický vzhľad hyf pokožky klobúka: hyalínny. [8]
- Usporiadanie hýf pokožky klobúka
- Usporiadanie hýf pokožky klobúka: lúčovitý. [8]
Usporiadanie hýf pokožky klobúka: prepletené. [8] - Dĺžka elementov pokožky klobúka
- Dĺžka elementov pokožky klobúka: 50–180 µm. [33]
- Šírka prvkov pokožky klobúka
- Šírka prvkov pokožky klobúka: 4–10 µm. [8]
Šírka prvkov pokožky klobúka: 4–8 µm. [33]
Reakcie s činidlami
Výtrusy
- Priemerný pomer dĺžky a šírky výtrusu
- Priemerný pomer dĺžky a šírky výtrusu: 1,7 (smerodajná odchýlka: 0,15, priemer). [8] [7]
- Prítomnosť apikulu bazídiospóry
- Prítomnosť apikulu bazídiospóry: prítomný (pomerne veľký). [8]
- Farba výtrusov pod mikroskopom
- Farba výtrusov pod mikroskopom: hyalínny. [5]
Farba výtrusov pod mikroskopom: hyalínny. [8] - Dĺžka výtrusu
- Dĺžka výtrusu: 4,5–6 µm. [5]
Dĺžka výtrusu: 5,5–7,2 µm. [33]
Dĺžka výtrusu: 4–6,5 µm. [8]
Dĺžka výtrusu: 5,2 µm (priemer). [8] - Pomer dĺžky a šírky výtrusu
- Pomer dĺžky a šírky výtrusu: 1,4–2. [8]
Pomer dĺžky a šírky výtrusu: 1,25–1,38. [33] - Tvar výtrusu
- Tvar výtrusu: elipsoidný. [5]
Tvar výtrusu: valcovitý. [5]
Tvar výtrusu: elipsoidný (široký). [33]
Tvar výtrusu: elipsoidný. [8]
Tvar výtrusu: elipsoidný (pretiahnutý). [8] - Hrúbka steny výtrusu
- Hrúbka steny výtrusu: tenkostenný. [8]
Dužina hymenofóru
Materiál a metódy výskumu
Mikroskopické údaje — zdroj a obmedzenia
Materiál: Vzorka [61/3/2]: 61 výtrusov z 3 plodníc a 2 zberov. Súbor meraní nebol stotožnený s úplným zoznamom položiek skúmaných v publikácii.
Rozsah čítania: Úryvky zo zdrojov.
Prečítal sa úryvok zo zdroja; úplný text a metódy neboli overené.
Obmedzenia: Priemer a odchýlka vzorky nie sú hranicami jednotlivého Q.
- Výsledky zaznamenané v zdrojoch — Počet výtrusov na bazídii
- Liczba zarodników na jednej podstawce wynosi 4. [33] [8]
- Výsledky zaznamenané v zdrojoch — Šírka hýf trámy
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [33]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Výsledky zaznamenané v zdrojoch — Dĺžka výtrusu
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [33] - Výsledky zaznamenané v zdrojoch — Šírka výtrusu
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [33]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [33]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [33]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [33]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [33]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [33]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [33]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [33]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [33]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [33]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [33]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [33]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [33]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [33]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [33]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [33]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
Materiál a metódy
India: Mehmood et al. (2022) opísali dva zbery z Bhimbatu v Drasse, z 19. a 20. augusta 2021, TMKVYPS21-39 a 21–43. Uviedli n = 20 výtrusov bez jednoznačného rozdelenia vzorky medzi zbery. Rezy boli skúmané v 5% KOH a 1% konžskej červeni. Trojčlenné zápisy rozmerov a Q boli v pôvodnom znení zachované; pri absencii definície strednej štatistickej hodnoty nebola táto svojvoľne označená ako priemer. Sekvencia OM977115 z 21–39 vykázala 100% podobnosť s MW628104. V texte metodika uvádza MEGA-X, zatiaľ čo popis obrázka uvádza MEGA6.0; rozpor zostáva pri štúdii.
Čína: Cui et al. (2026), sekcia 74: vzorka [61/3/2] znamená 61 výtrusov z 3 plodníc a 2 zberov. Najmenej 90% meraní dĺžky spadá do 4,5–6 µm a úplné hraničné hodnoty sú 4–6,5 µm; šírka má úplné hraničné hodnoty 2,5–4 µm. Qm 1,7 ± 0,15 je priemer so smerodajnou odchýlkou vzorky. Preparáty boli montované v 5% KOH, konžská červeň sa použila podľa potreby a amyloidnosť sa overovala Melzerovým činidlom. Pre iné štruktúry bol uvedený aj fázový kontrast 1000×. SEM nebola tomuto druhu implicitne priradená. Obr. 93 pochádza z HKAS106635 a sám o sebe neidentifikuje celú vzorku.
Severná Európa: Heilmann-Clausen et al. (2017) uvádzajú vo všeobecnej metodike najmenej 20 náhodne vybraných výtrusov na zber a preparáty v 2% KOH alebo 5–10% NH3. Tomuto druhu nebolo svojvoľne priradené n = 20 ani obe médiá súčasne. Tabuľka 1 spája pomenované zbery zo Slovenska, Dánska a Holandska s číslami položiek a sekvencií; samotné roky a kódy zberov nevymedzujú mesiace fruktifikácie.
Odčítané lokality
Poľsko: Kompletná karta grzyby.pl obsahuje 15 datovaných záznamov GRej, vrátane opakovaných potvrdení lokalít. Ide o lokálne pozorovania z rokov 2006 až 2023, nie o zhodnotenie početnosti v celom Poľsku. Vybrané dátumy zahŕňajú október, november a 6. december 2020 pri Dębogóre. Wojewoda (2003), záznam T. cingulatum, opisuje zber z Batowického cintorína v Krakove z roku 1998 a uvádza október; pod T. ramentaceum uvádza historický záznam z Bukového pralesa (Puszcza Bukowa), zo Štetína a okolia. Dátumy publikácie neboli prenesené na dátumy zberu. Vojvodstvá a presné lokality bez zodpovedajúceho spoločného identifikátora zostávajú v zachovanom zázname.
Zahraničný rozsah: V analýze z roku 2017 sú zbery MC03-252 z Havešovej na Slovensku, dánsky neotyp MC96-134, ďalší dánsky zber MC96-170 z Borumu a holandský MEN95210 z Boekweitveentje v Drenthe. Čínsky materiál zahŕňa S’-čchuan (Kch康-ting/Gonggashan, 2700 m; Pching-wu, 2500 m) a Jun-nan (Shangri-La/Wongshui, 3400 m). Indický článok uvádza aj európske krajiny na základe starších prác; celé citované knihy neboli automaticky prečítané a tento zoznam nebol uznaný za aktuálny úplný areál rozšírenia.
Dôkaz mykorízy s vŕbou
Skúmaný koreň: Leake et al. (2004) opísali ektomykorízne koreňové špičky vŕby plazivej Salix repens v Newborough Warren. Skúmali sa tri skupiny vzoriek koreňov; autori pozorovali mykorízne plášte a spojenia rizomorfov a vzorky vykazovali profil ITS-RFLP typu I zhodný so skúmaným symbiontom Monotropa. Ide o dôkaz presahujúci samotné susedstvo stromov. Tabuľka 5 uvádza pre tieto tri vzorky Salix „nd“ pre mtLSU a oblasť ITS, čo teda neznamená tri nezávisle sekvenované vzorky. Druh spoločného typu bol určený na základe reprezentatívnych sekvencií a porovnania s plodnicami.
Rozsah partnera: Tento priamy dôkaz sa týka Salix repens. Záznam týkajúci sa Salix caprea v Millers Dale opisuje Monotropa rastúcu pod vŕbou a nepredstavuje samostatnú analýzu koreňov tejto vŕby. V údajoch je zaznamenaný dostupný rod Salix; presný názov vŕby plazivej zostáva pri štúdii. Touto metódou neboli potvrdené všetky druhy vŕb ani iné stromy spomínané v opisoch stanovíšť.
Skríning extraktov
Materiál 46/07: Otto (2017), príloha A3, uvádza materiál T. cingulatum 46/07 označený ako „fr“. Pre metanolové a etylacetátové extrakty tabuľka vykazuje absenciu inhibície v troch testoch označených SEPTTR, PHYTIN a CLADCU. V stĺpci BOTRCI je „n.t.“ — netestované; tento záznam nebol zmenený na negatívny výsledok. Ide o kvalitatívne výsledky konkrétneho materiálu a testov bez vyvodzovania záverov o úžitkovom alebo liečebnom využití druhu.
Limity údajov: Z prečítaného výťahu neboli stanovené koncentrácie, počet opakovaní, číselný koncový bod ani číslo položky v herbári a miesto zberu. Neboli automaticky rozlúštené všetky kódy testovacích organizmov. Priama adresa repozitára vrátila HTML stránku namiesto PDF; zachovaný odpočet tabuľky nie je vyhlásením o prečítaní celej dizertačnej práce. Výsledky neboli prenesené na tepelne upravené plodnice, bezpečnosť potravín ani klinickú účinnosť.
Zloženie materiálu z Kargilu — rozsah štúdie
Materiál a replikácie: Mayirnao et al. (2025) zozbierali zrelé plodnice v Drass v okrese Kargil v septembri 2022, v nadmorskej výške 3276 m n. m. Bol oddelený profil metabolitov GC–MS, stanovenia sušiny a molárne pomery. Tri opakovania stanovení neurčujú počet nezávislých plodníc. S podrobnými protokolmi a molekulárnou identifikáciou autori odkazujú na suplement; suplement nebol čítaný.
Význam percent: Tabuľka 1 uvádza percentuálne zloženie profilu metabolitov GC–MS. Nejde o hmotnostné percento zložky v plodnici. Každý údaj stĺpca T. cingulatum aj zdrojové SD boli zachované. Osobitne zostávajú výsledky nedetekcie: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Nedetekcia danou metódou neznamená absolútnu neprítomnosť látky. Kyselina hydroxyglutarová sa v tabuľke vyskytuje v dvoch rôznych riadkoch; odlišný kvantitatívny záznam a nedetekcia neboli zlúčené.
Antioxidačné testy: V sekcii 3.10 autori uviedli pre T. cingulatum IC50 = 9,03 mg/ml v teste vychytávania peroxidu vodíka a 5,52 mg/ml v teste redukcie hexakyanoželezitanu draselného. Ide o výsledky testov, nie o potvrdenie liečby, suplementácie ani bezpečnosti konzumácie. Hlavný text nerieši všetky podrobnosti protokolu testov; neboli nahradené testom DPPH ani iným koncovým bodom. V abstrakte bola vyzdvihnutá redukčná aktivita V. bombycina, napriek nižšej hodnote uvedenej pre T. cingulatum v sekcii výsledkov.
Overenie výskytu — rozsah a obmedzenia
Materiál: Dokładny zapis źródłowy dla BG
Rozsah čítania: Výňatky zo zdrojov.
Bol prečítaný výňatok zo zdroja; úplný text a metódy neboli overené.
Dátum preskúmania: 10.11.2026.
Obmedzenia: Rozsah vychádza z uvedeného zdroja; bez rozširovania na iné oblasti alebo obdobia.
Rozsah spracovania
Pred dokončením vyžaduje záznam doplnenie alebo vyrovnanie.
- Nové zdroje si vyžadujú vyhodnotenie informácií zaznamenaných počas prehľadu.
Právny základ a rozsah hodnotenia
Predpisy pre lokalitu: Poľsko
Základ informácií o ochrane
Druh nie je uvedený v prílohách vyhlášky o druhovej ochrane húb (Dz.U.2014/1408).
Základ informácií o obchode
Druh nie je uvedený v zozname na uvádzanie na trh alebo výrobu hubových produktov (Dz.U.2026/258,załącznik1); nejde o klasifikáciu jedlosti.
Analytické výsledky
Samostatné zdrojové analytické výsledky
- Izoleucín — podiel v profile GC–MS
- Výsledok stanovenia je 0,59 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,14 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Leucín — podiel v profile GC–MS
- Výsledok stanovenia je 0,44 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,08 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Lyzín — podiel v profile GC–MS
- Výsledok stanovenia je 0,65 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,04 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Fenylalanín — podiel v profile GC–MS
- Výsledok stanovenia je 0,58 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,15 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Treonín — podiel v profile GC–MS
- Výsledok stanovenia je 2,22 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,45 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Valín — podiel v profile GC–MS
- Výsledok stanovenia je 1,12 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,09 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Alanín — podiel v profile GC–MS
- Výsledok stanovenia je 2,64 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,59 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Asparagín — podiel v profile GC–MS
- Výsledok stanovenia je 0,14 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,01 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina asparágová — podiel v profile GC–MS
- Výsledok stanovenia je 0,26 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,07 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina glutámová — podiel v profile GC–MS
- Výsledok stanovenia je 0,98 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,35 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Glycín — podiel v profile GC–MS
- Výsledok stanovenia je 2,11 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,78 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Prolín — podiel v profile GC–MS
- Výsledok stanovenia je 0,59 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,28 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Serín — podiel v profile GC–MS
- Výsledok stanovenia je 1,0 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,14 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Acetyllyzín — podiel v profile GC–MS
- Výsledok stanovenia je 0,21 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,03 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Ergotionín — podiel v profile GC–MS
- Výsledok stanovenia je 0,16 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,03 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Glycylprolín — podiel v profile GC–MS
- Výsledok stanovenia je 0,81 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,16 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- 5-oxoprolín — podiel v profile GC–MS
- Výsledok stanovenia je 7,95 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,04 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Adenozín — podiel v profile GC–MS
- Výsledok stanovenia je 0,27 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,1 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Etanolamín — podiel v profile GC–MS
- Výsledok stanovenia je 1,36 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,28 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Metyladenozín — podiel v profile GC–MS
- Výsledok stanovenia je 0,19 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,01 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Uracil — podiel v profile GC–MS
- Výsledok stanovenia je 0,59 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,22 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Močovina — podiel v profile GC–MS
- Výsledok stanovenia je 1,88 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,12 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Uridín — podiel v profile GC–MS
- Výsledok stanovenia je 1,04 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,17 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Deoxygalaktóza — podiel v profile GC–MS
- Výsledok stanovenia je 0,04 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,01 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Erytróza — podiel v profile GC–MS
- Výsledok stanovenia je 0,2 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,05 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Fruktóza — podiel v profile GC–MS
- Výsledok stanovenia je 1,55 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,41 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Fruktopyranóza — podiel v profile GC–MS
- Výsledok stanovenia je 0,42 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,06 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Talóza — podiel v profile GC–MS
- Výsledok stanovenia je 0,86 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,06 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Trehalóza — podiel v profile GC–MS
- Výsledok stanovenia je 18,67 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,69 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Xylulóza — podiel v profile GC–MS
- Výsledok stanovenia je 0,25 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,08 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- α-mannobióza — podiel v profile GC–MS
- Výsledok stanovenia je 0,28 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,01 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina deoxytetrónová — podiel v profile GC–MS
- Výsledok stanovenia je 0,22 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,04 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina glukónová — podiel v profile GC–MS
- Výsledok stanovenia je 1,55 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,26 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina glycerová — podiel v profile GC–MS
- Výsledok stanovenia je 0,62 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,23 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina hydroxyglutarová — podiel v profile GC–MS
- Výsledok stanovenia je 0,29 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,1 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina ribónová — podiel v profile GC–MS
- Výsledok stanovenia je 0,19 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,06 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina xylónová — podiel v profile GC–MS
- Výsledok stanovenia je 0,52 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,11 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Erytritol — podiel v profile GC–MS
- Výsledok stanovenia je 1,28 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,37 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Glucitol — podiel v profile GC–MS
- Výsledok stanovenia je 10,33 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 2,42 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Glycerol — podiel v profile GC–MS
- Výsledok stanovenia je 5,71 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,45 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Mezoerytritol — podiel v profile GC–MS
- Výsledok stanovenia je 0,05 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,03 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Myo-inozitol — podiel v profile GC–MS
- Výsledok stanovenia je 1,05 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,2 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Ribitol — podiel v profile GC–MS
- Výsledok stanovenia je 2,36 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,18 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina myristová — podiel v profile GC–MS
- Výsledok stanovenia je 0,65 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,03 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina palmitová — podiel v profile GC–MS
- Výsledok stanovenia je 3,7 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,66 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina stearová — podiel v profile GC–MS
- Výsledok stanovenia je 1,8 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,41 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina olejová — podiel v profile GC–MS
- Výsledok stanovenia je 6,05 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,5 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina palmitoelaidová — podiel v profile GC–MS
- Výsledok stanovenia je 0,22 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,11 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Monooleoylglycerol — podiel v profile GC–MS
- Výsledok stanovenia je 1,47 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,14 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Glycerolmonopalmitát — podiel v profile GC–MS
- Výsledok stanovenia je 0,39 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,11 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina linolová — podiel v profile GC–MS
- Výsledok stanovenia je 5,3 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,08 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina azelaová — podiel v profile GC–MS
- Výsledok stanovenia je 1,12 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,34 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Stigmasterol — podiel v profile GC–MS
- Výsledok stanovenia je 0,11 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,0 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina citrónová — podiel v profile GC–MS
- Výsledok stanovenia je 1,77 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,47 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina etylmalónová — podiel v profile GC–MS
- Výsledok stanovenia je 0,29 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,11 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina fumarová — podiel v profile GC–MS
- Výsledok stanovenia je 1,15 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,13 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina hydroxymalónová — podiel v profile GC–MS
- Výsledok stanovenia je 0,34 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,04 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina maleínová — podiel v profile GC–MS
- Výsledok stanovenia je 4,31 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,64 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina metylmaleínová — podiel v profile GC–MS
- Výsledok stanovenia je 0,07 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,02 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina metyljantárová — podiel v profile GC–MS
- Výsledok stanovenia je 0,23 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,04 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina pyrohroznová — podiel v profile GC–MS
- Výsledok stanovenia je 0,22 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,001 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina šťaveľová — podiel v profile GC–MS
- Výsledok stanovenia je 0,15 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,06 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina šikimová — podiel v profile GC–MS
- Výsledok stanovenia je 0,37 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,1 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina jantárová — podiel v profile GC–MS
- Výsledok stanovenia je 1,0 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,17 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Kyselina fosforečná — podiel v profile GC–MS
- Výsledok stanovenia je 0,6 % profilu GC–MS. Hmotnostný základ nebol v zdroji uvedený. Neistota: 0,1 % profilu GC–MS (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: GC–MS po derivatizácii MSTFA; percentuálne zloženie profilu metabolitov podľa tabuľky 1.[36] [37]
- Dusík
- Výsledok stanovenia je 12,84 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,35 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: analyzátor CHNS.[36] [37]
- Síra
- Výsledok stanovenia je 1,02 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,17 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: analyzátor CHNS.[36] [37]
- Fosfor
- Výsledok stanovenia je 0,94 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,03 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: podrobná metóda pre P nebola v prečítanej časti metód jednoznačne priradená.[36] [37]
- Sodík
- Výsledok stanovenia je 22,01 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 3,83 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: plameňová fotometria.[36] [37]
- Draslík
- Výsledok stanovenia je 31,2 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,75 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: plameňová fotometria.[36] [37]
- Vápnik
- Výsledok stanovenia je 0,68 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,12 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Horčík
- Výsledok stanovenia je 0,67 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 0,01 mg/g (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Hliník
- Výsledok stanovenia je 39,07 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 3,26 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Meď
- Výsledok stanovenia je 53,95 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 2,4 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Železo
- Výsledok stanovenia je 223,05 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 38,74 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Nikel
- Výsledok stanovenia je 22,41 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 3,93 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Chróm
- Výsledok stanovenia je 30,92 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 2,94 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: ICP–MS.[36] [37]
- Mangán
- Výsledok stanovenia je 55,6 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 5,75 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: ICP–MS.[36] [37]
- Selén
- Výsledok stanovenia je 26,43 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 1,09 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: ICP–MS.[36] [37]
- Molybdén
- Výsledok stanovenia je 61,22 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 5,91 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: ICP–MS.[36] [37]
- Zinok
- Výsledok stanovenia je 30,58 mikrogramov na gram. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Neistota: 4,77 mikrogramov na gram (štandardná odchýlka). Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: atómová absorpčná spektrometria.[36] [37]
- Molárny pomer OA/(Ca+Mg)
- Výsledok stanovenia je 0,4. Metóda podľa zdroja: molárny pomer uvedený autormi; OA — kyselina šťaveľová, PA — kyselina fytová.[36] [37]
- Molárny pomer PA/Fe
- Výsledok stanovenia je 0,16. Metóda podľa zdroja: molárny pomer uvedený autormi; OA — kyselina šťaveľová, PA — kyselina fytová.[36] [37]
- Molárny pomer PA/Ca
- Výsledok stanovenia je 0,13. Metóda podľa zdroja: molárny pomer uvedený autormi; OA — kyselina šťaveľová, PA — kyselina fytová.[36] [37]
- Molárny pomer PA/Zn
- Výsledok stanovenia je 6,33. Metóda podľa zdroja: molárny pomer uvedený autormi; OA — kyselina šťaveľová, PA — kyselina fytová.[36] [37]
- Celkový proteín
- Výsledok stanovenia je 312 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: Bradfordova metóda.[36] [37]
- Celkové fenoly — stanovenie podľa Folina–Ciocalteua
- Výsledok stanovenia je 38,33 mg/g. Výsledok sa vzťahuje na sušinu skúmaného materiálu. Štatistika: priemer. n = 3 (opakovania uvedené v zdroji; biochemické merania). Metóda podľa zdroja: metóda podľa Folina–Ciocalteua; kalibrant nie je v prečítanej časti metód jednoznačne uvedený.[36] [37]
Ekologické štúdie
Doplňujúce zdroje výskytu
Bulharsko: Assyov (2023) opísal lokalitu v Borovci v pohorí Rila: 8. októbra 2016 a 13. novembra 2020, položky SOMF29917 a SOMF30896. Rástli pod Salix caprea a Betula pendula v mladom miešanom ihličnatom lese; prítomnosť brezy na stanovišti nie je dôkazom mykorízy s brezou. Dva mesiace zberov neurčujú celú sezónu v krajine. Historický bulharský záznam mena T. ramentaceum z roku 1955 autor označil za neistý, bez nájdenej položky.
Slovensko: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), s. 28, uvádza zber S. Glejduru pod vŕbami v arboréte Borová hora vo Zvolene, 320 m n. m., 11. októbra 1995. Rok uvádza zhrnutie zoznamu nálezov z roku 1995. Prečítaný záznam potvrdzuje októbrové pozorovanie, nie celú slovenskú sezónu. Meno v zdroji zachovalo historický zápis autorstva.
Veľká Británia: Norfolk Fungus Study Group publikuje 20 záznamov z 17 lokalít v rokoch 1988–2025. Datované záznamy pripadajú na október–december; Felthorpe Woods má zber z 22. decembra 1988. Databáza zahŕňa okrem iného Whitlingham Marsh, Horsey Warren, Thetford a Holt. Väzby na vŕbu alebo borovicu boli zapísané ako pozorované susedstvo, bez predpokladaného potvrdenia koreňového partnera. Údaje z Norfolku neboli zovšeobecnené na celú sezónu celej Veľkej Británie.
Holandsko: Atlas NDFF označuje druh ako bežný na základe overených pozorovaní z rokov 2004–2023. Osobitne uvádza kategóriu zraniteľný z červeného zoznamu 2008; frekvencia a kategória ohrozenia opisujú odlišné otázky. Poukazuje na piesok chudobný na humus a väzbu na Salix repens. Fenologický graf je modelovaný z pozorovaní 2000–2021; neboli z neho prevzaté neprečítané číselné hodnoty.
Biotop a výskyt
Potvrdený areál výskytu
Všetky oblasti potvrdené v uložených zdrojových údajoch.
| Krajina | Regióny a lokality | Tvorba plodníc | Zdroje |
|---|---|---|---|
| Bulharsko | V uložených údajoch neboli určené regióny | X–XI — minimálny rozsah pozorovaní |
|
| Čína | S’-čchuan; Jün-nan (Yunnan) | VIII–X — minimálny rozsah pozorovaní |
|
| Česko | Plzenský kraj; Ústecký kraj | VII–XI |
|
| Dánsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Veľká Británia | V uložených údajoch neboli určené regióny | X–XII — minimálny rozsah pozorovaní |
|
| India | Ladak; Drass, Ladak; Kargil, Ladak | VIII — minimálny rozsah pozorovaní | |
| Holandsko | V uložených údajoch neboli určené regióny | Neurčené |
|
| Poľsko | Lodžské vojvodstvo; Malopoľské vojvodstvo; Podleské vojvodstvo; Západopomoranské vojvodstvo; Pomoranské vojvodstvo; Siemianowice Śląskie; Lubuské vojvodstvo | X–XII — minimálny rozsah pozorovaní |
|
| Slovensko | V uložených údajoch neboli určené regióny | X — minimálny rozsah pozorovaní |
|
Zdroje
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- ŚredniQ i odchylenie standardowe próby
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka