
Jedlý

Vyžaduje úpravu

Nastavte polohu, abyste viděli údaje pro svůj region.
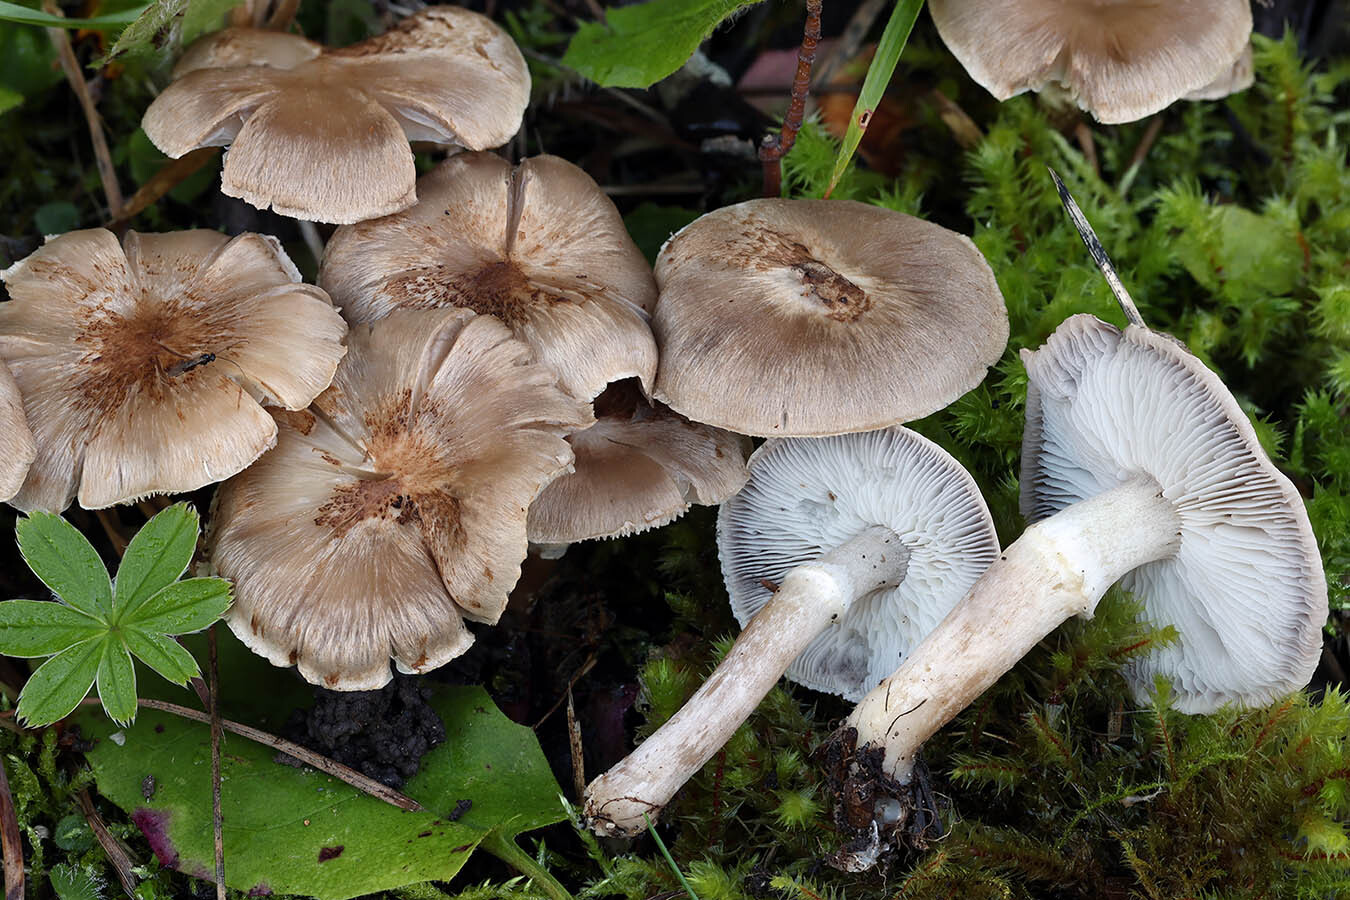
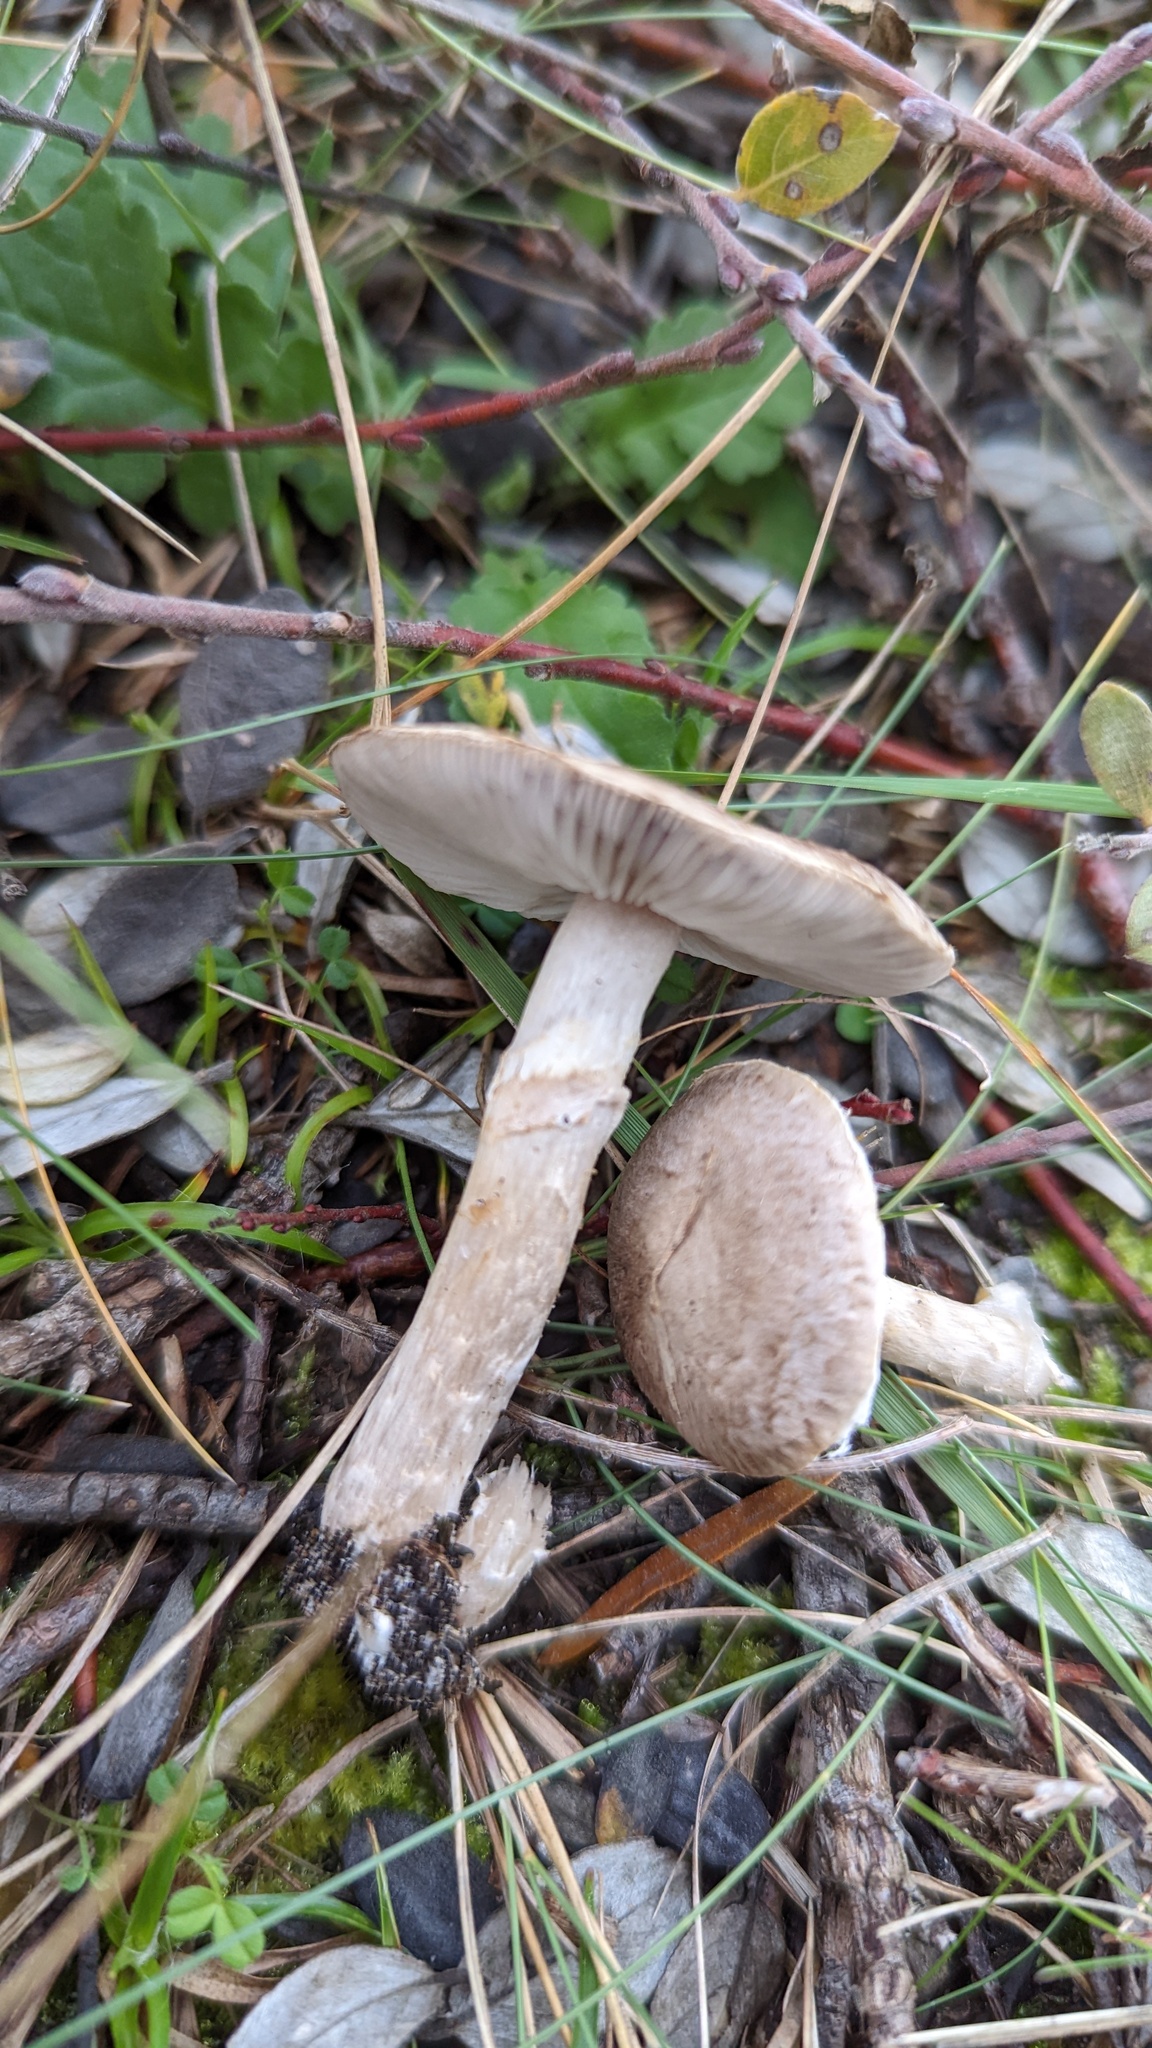
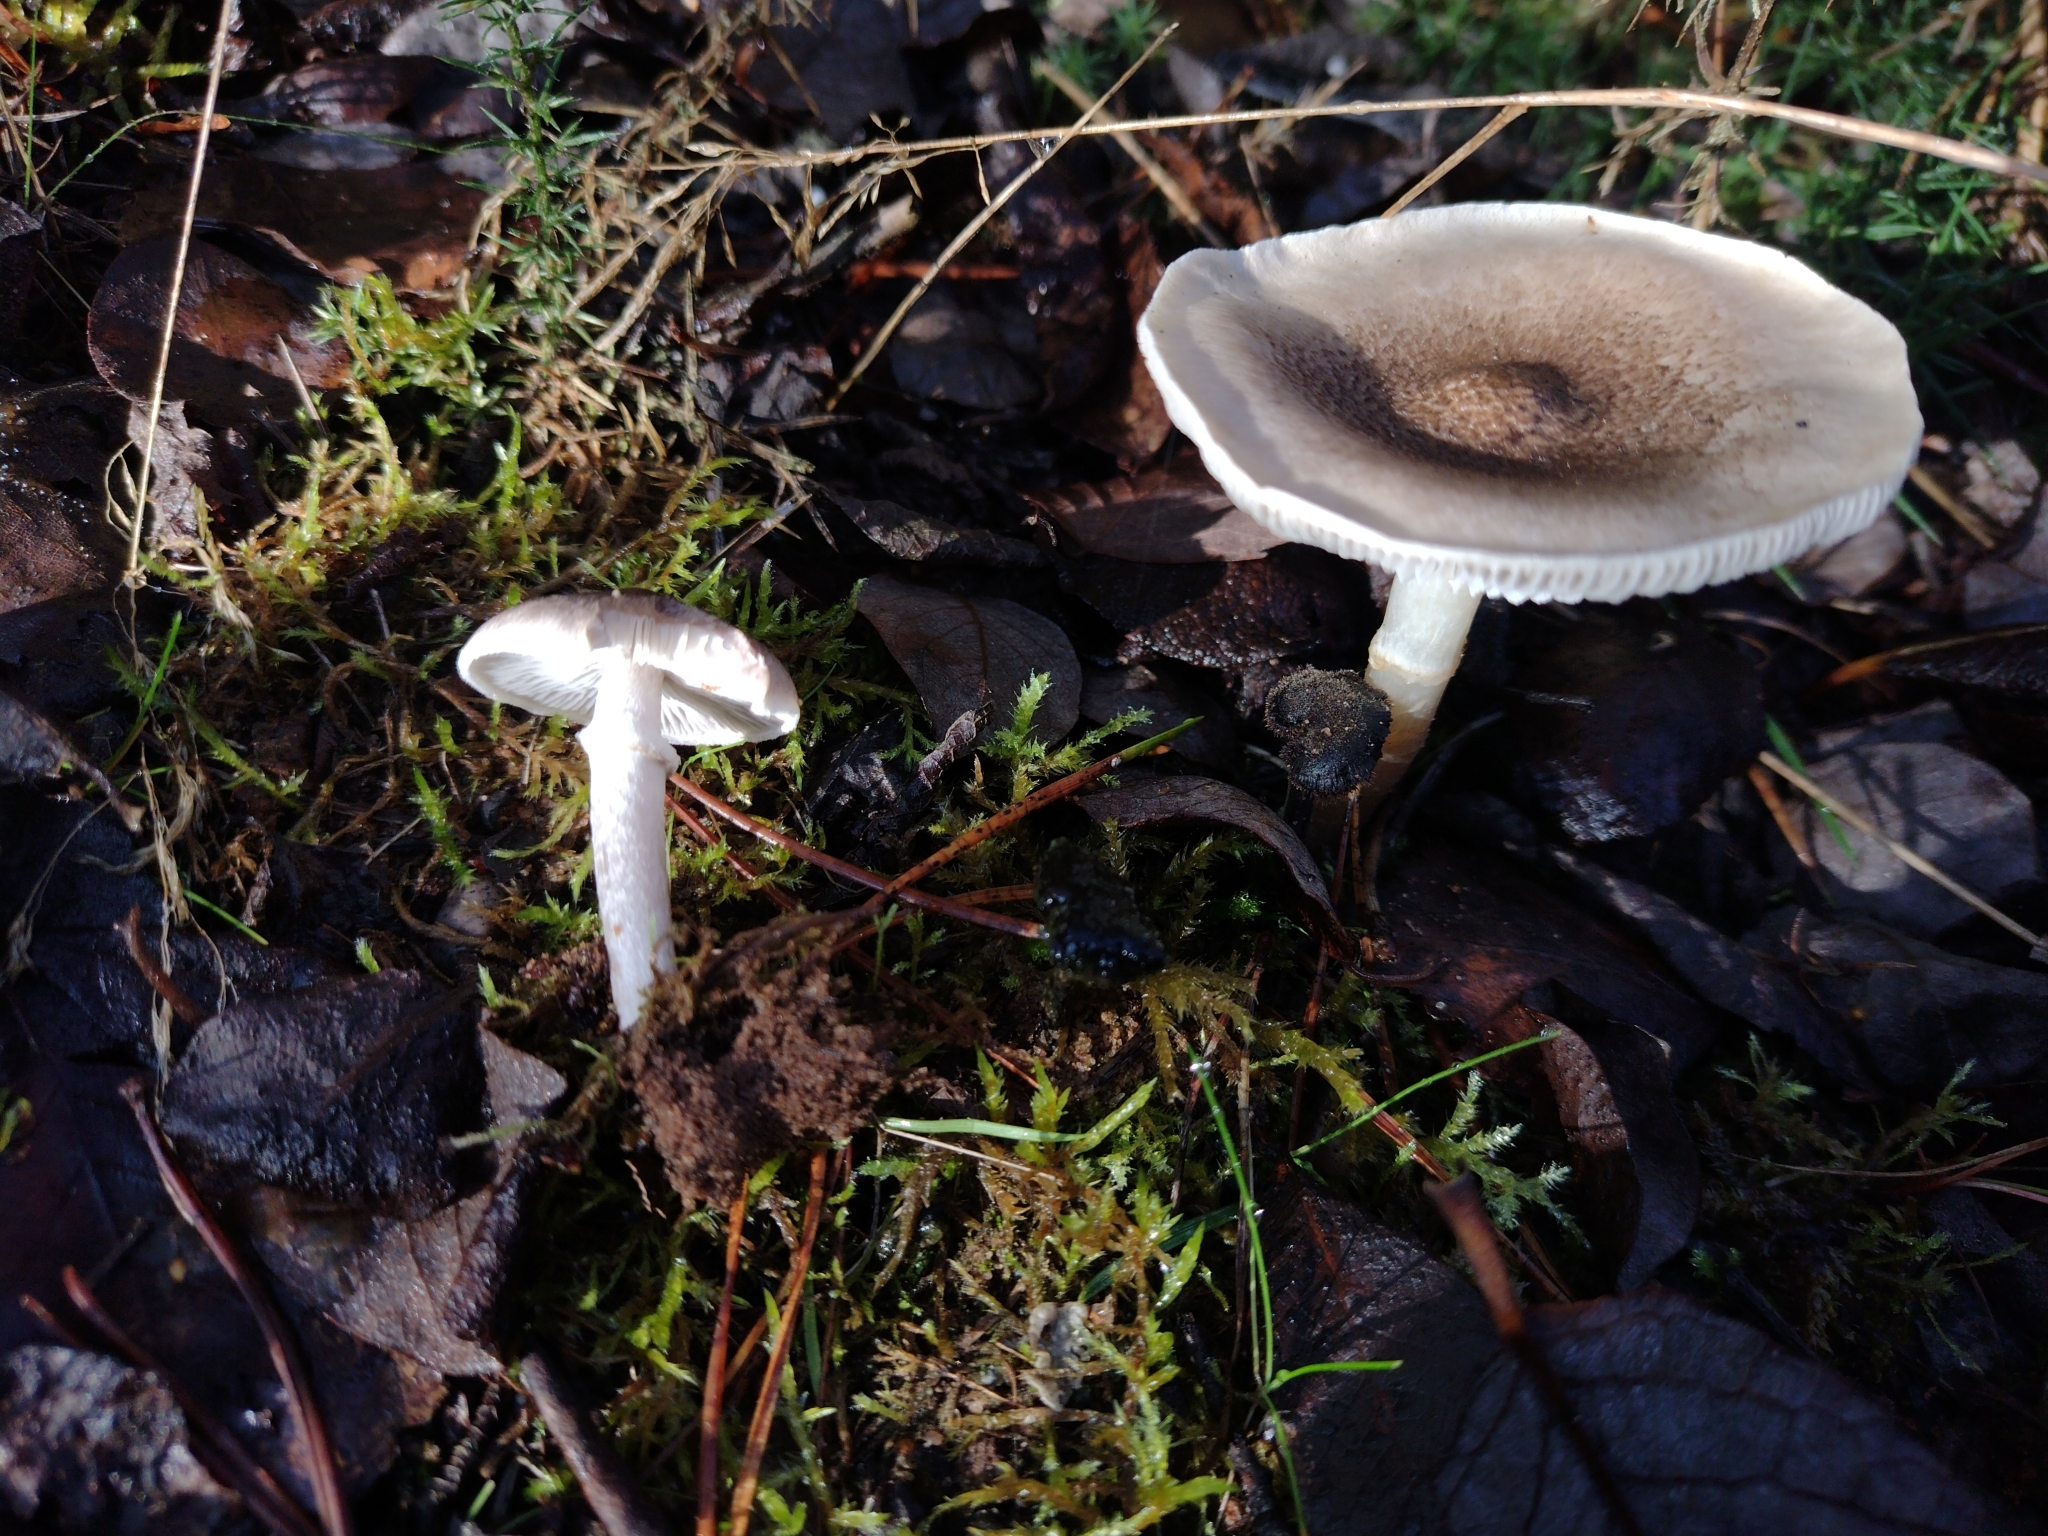
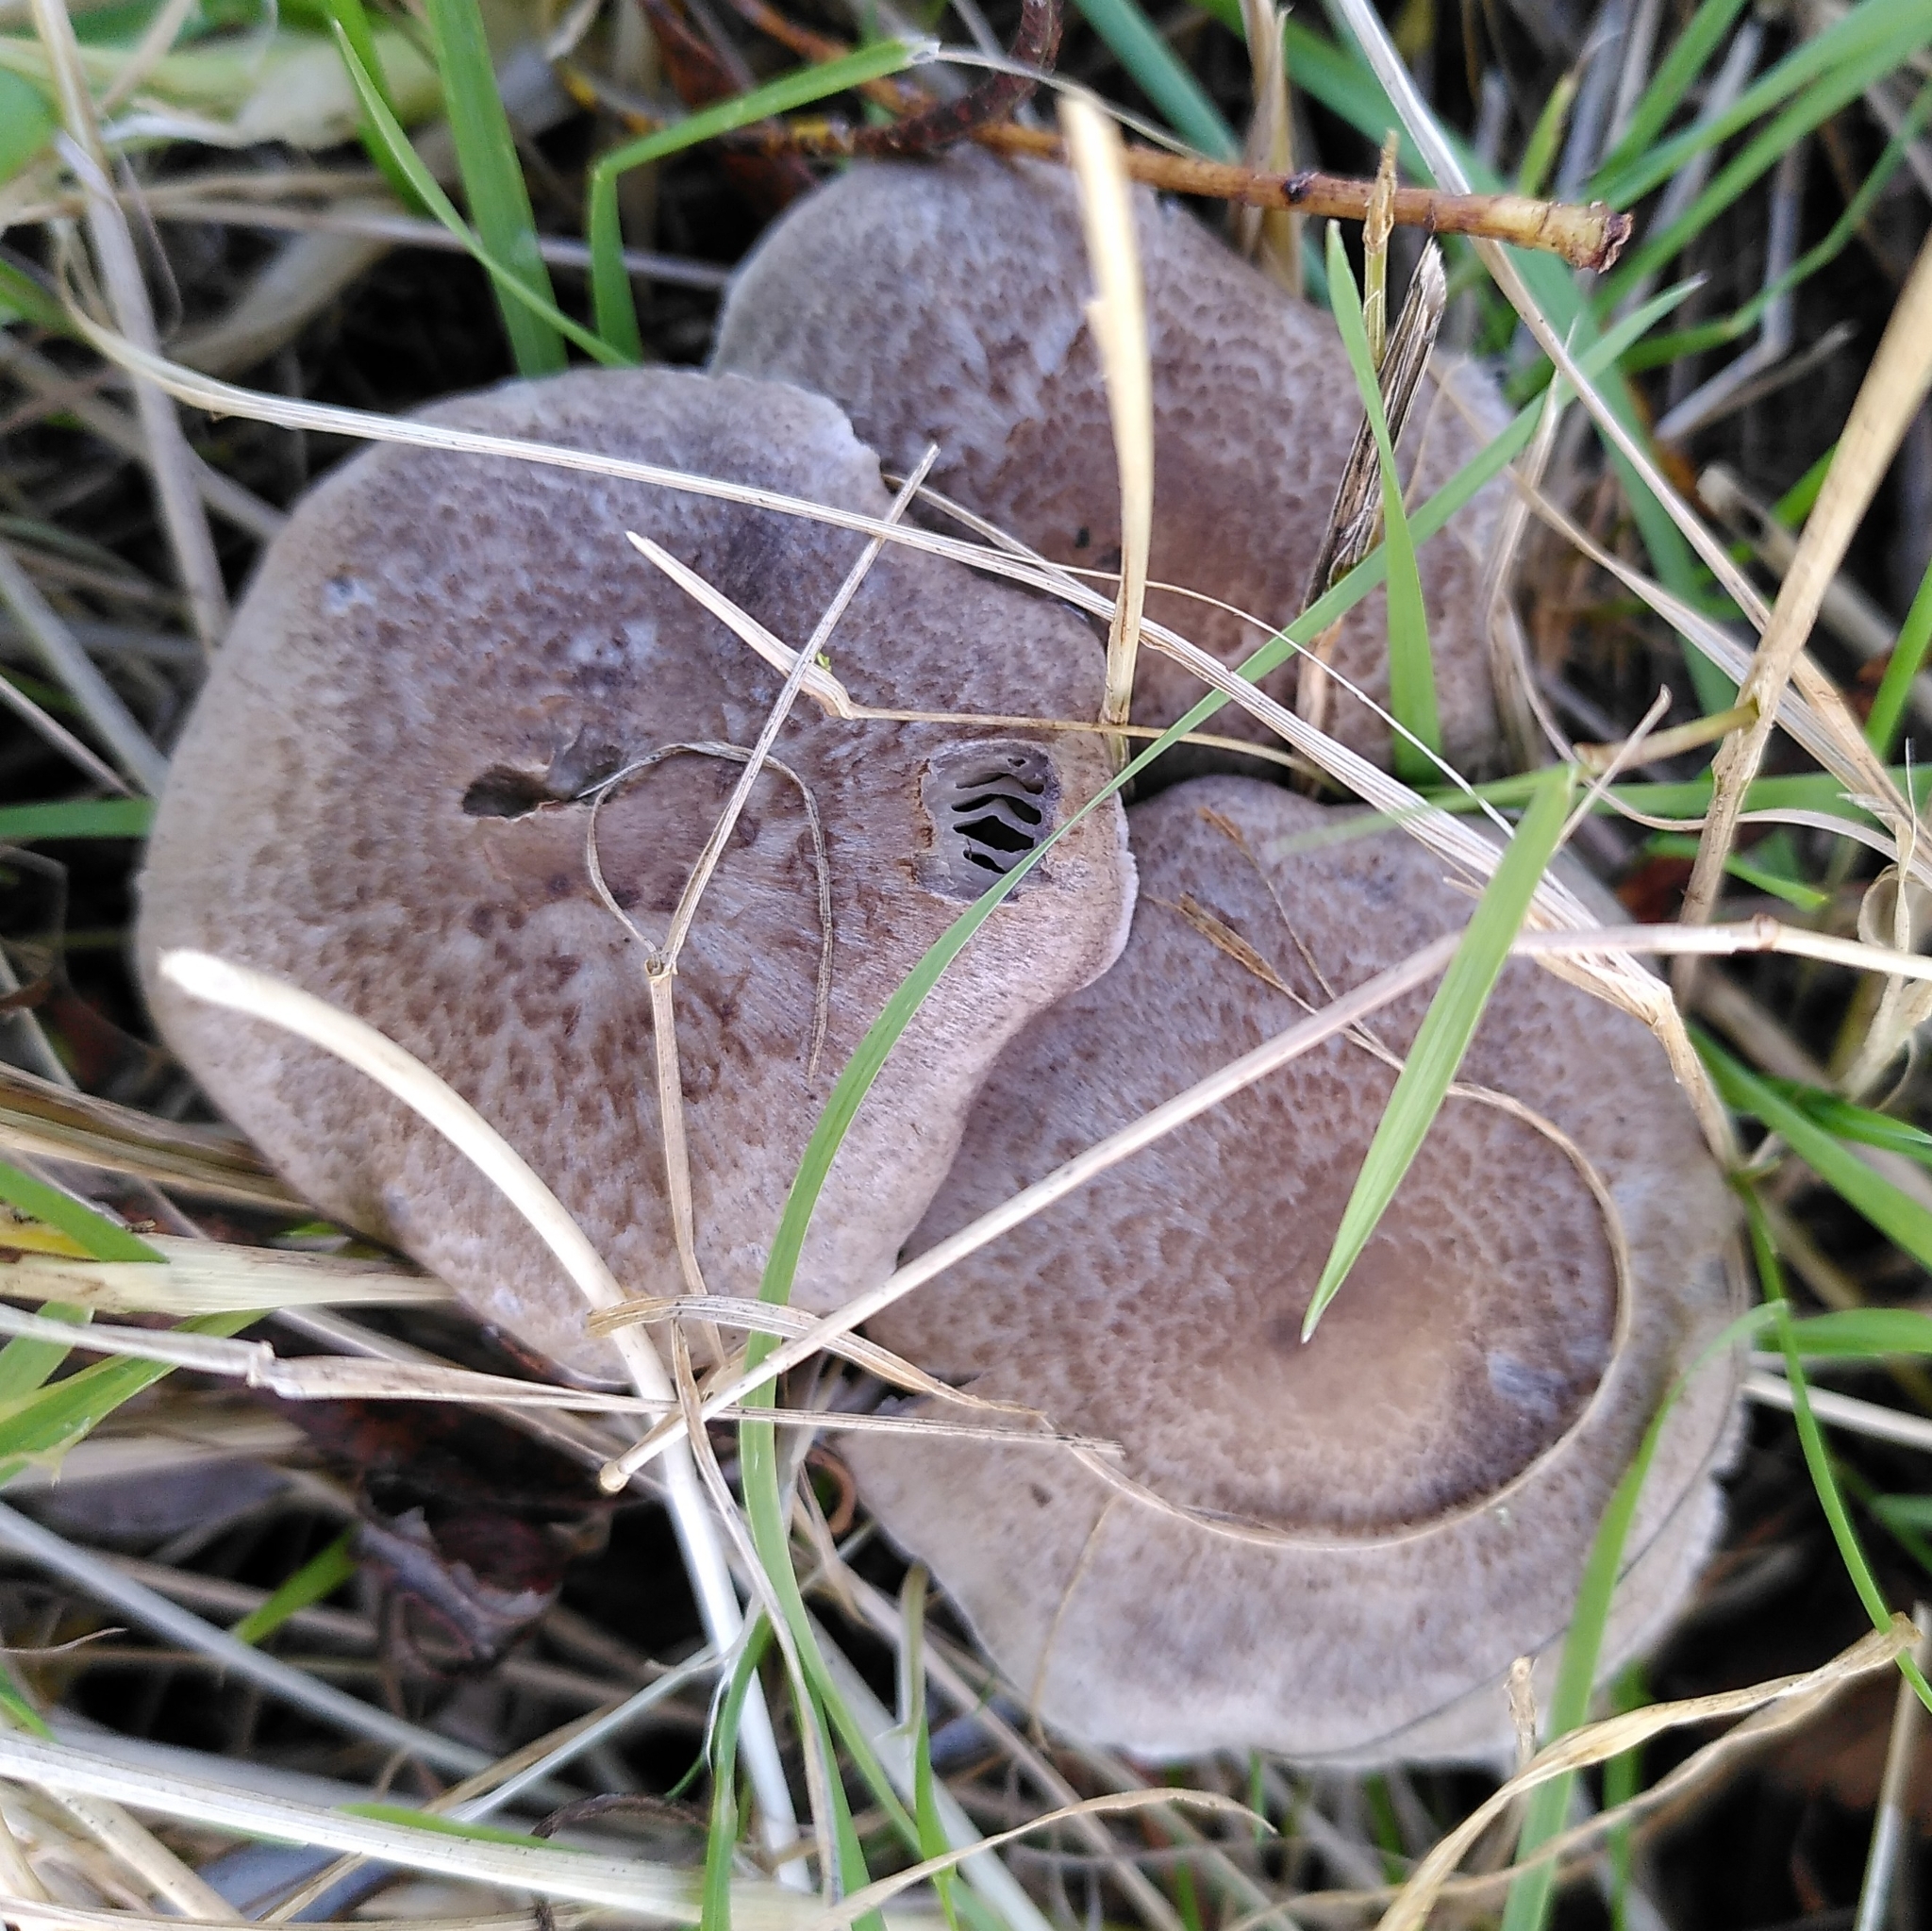
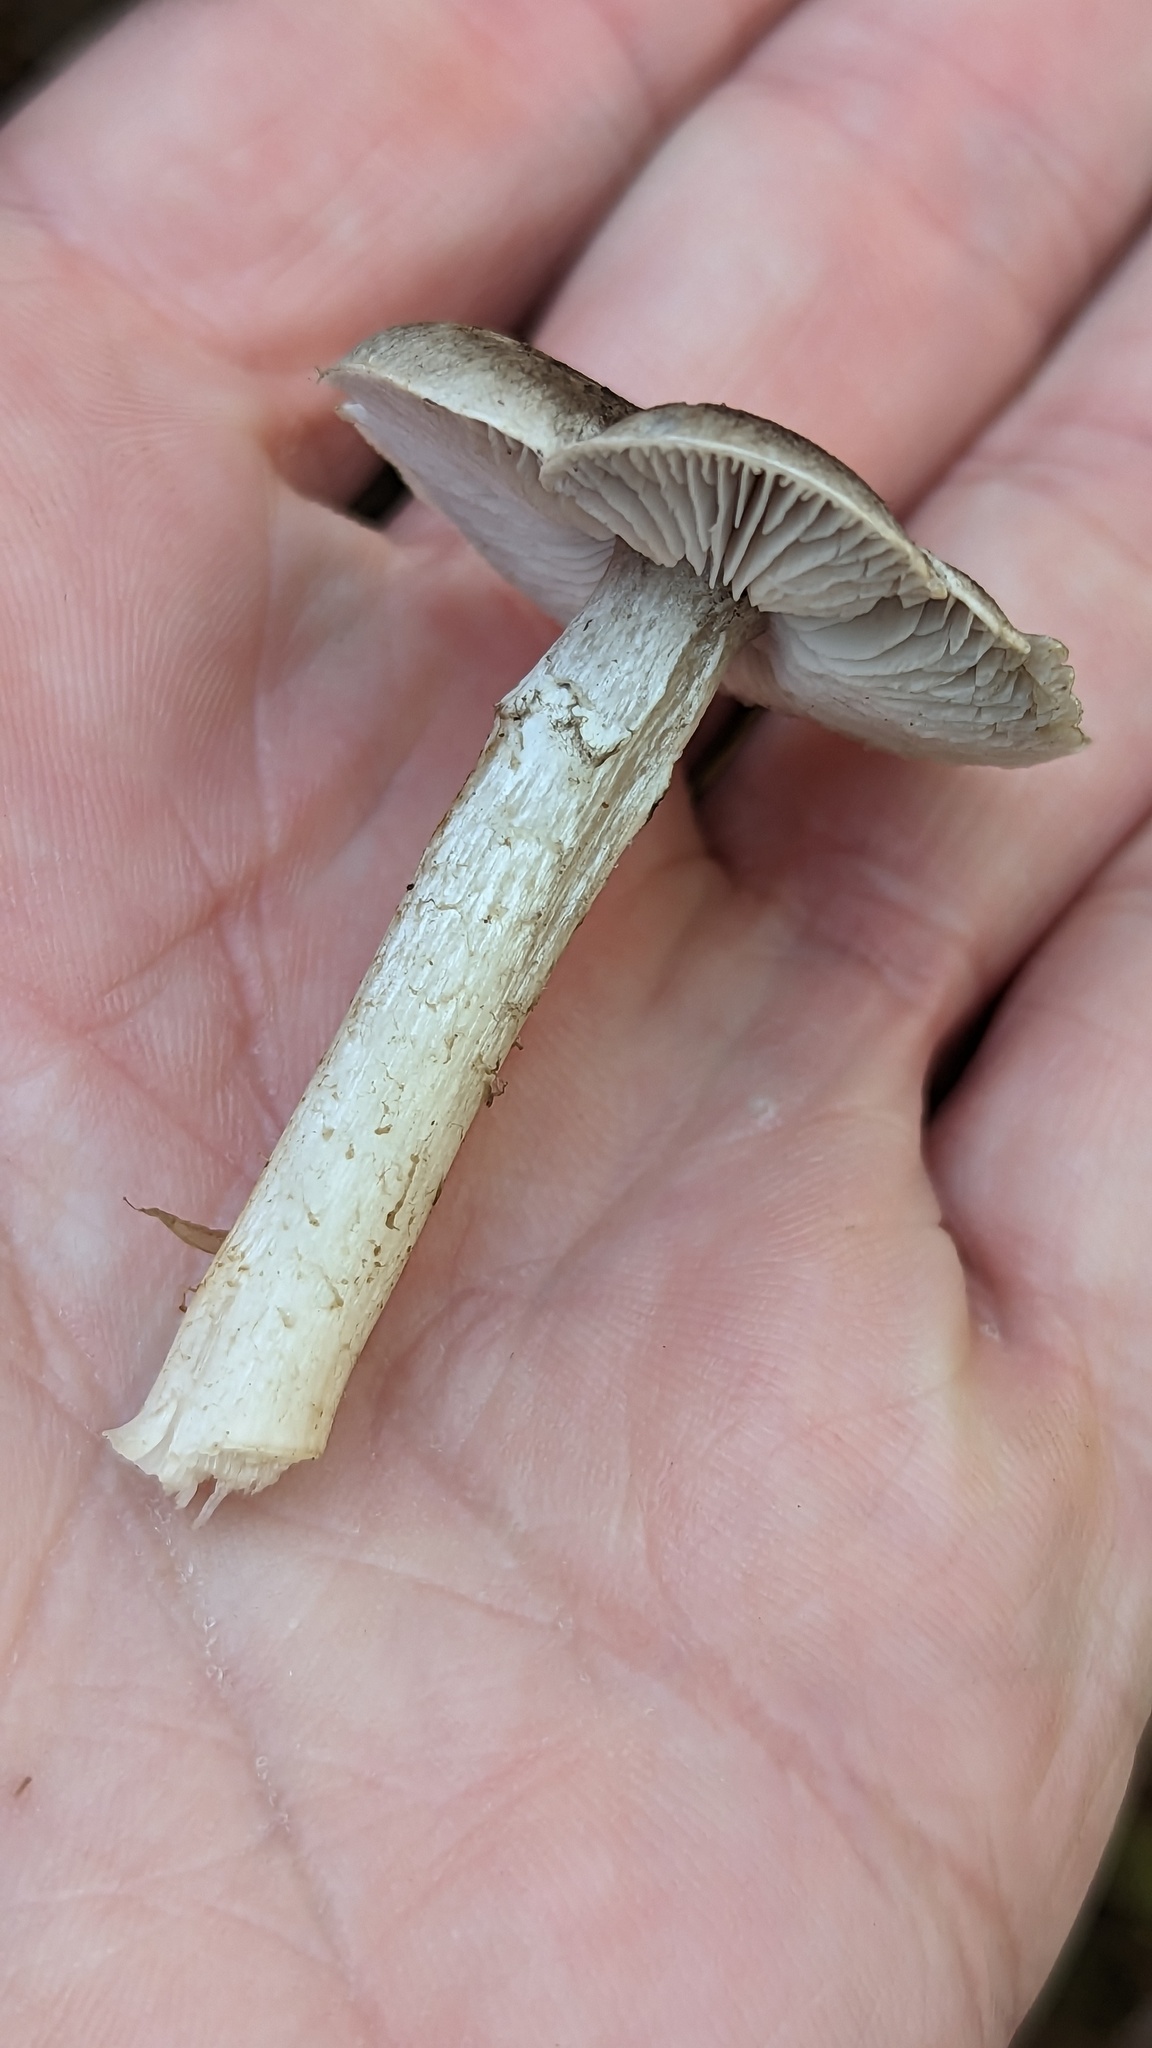
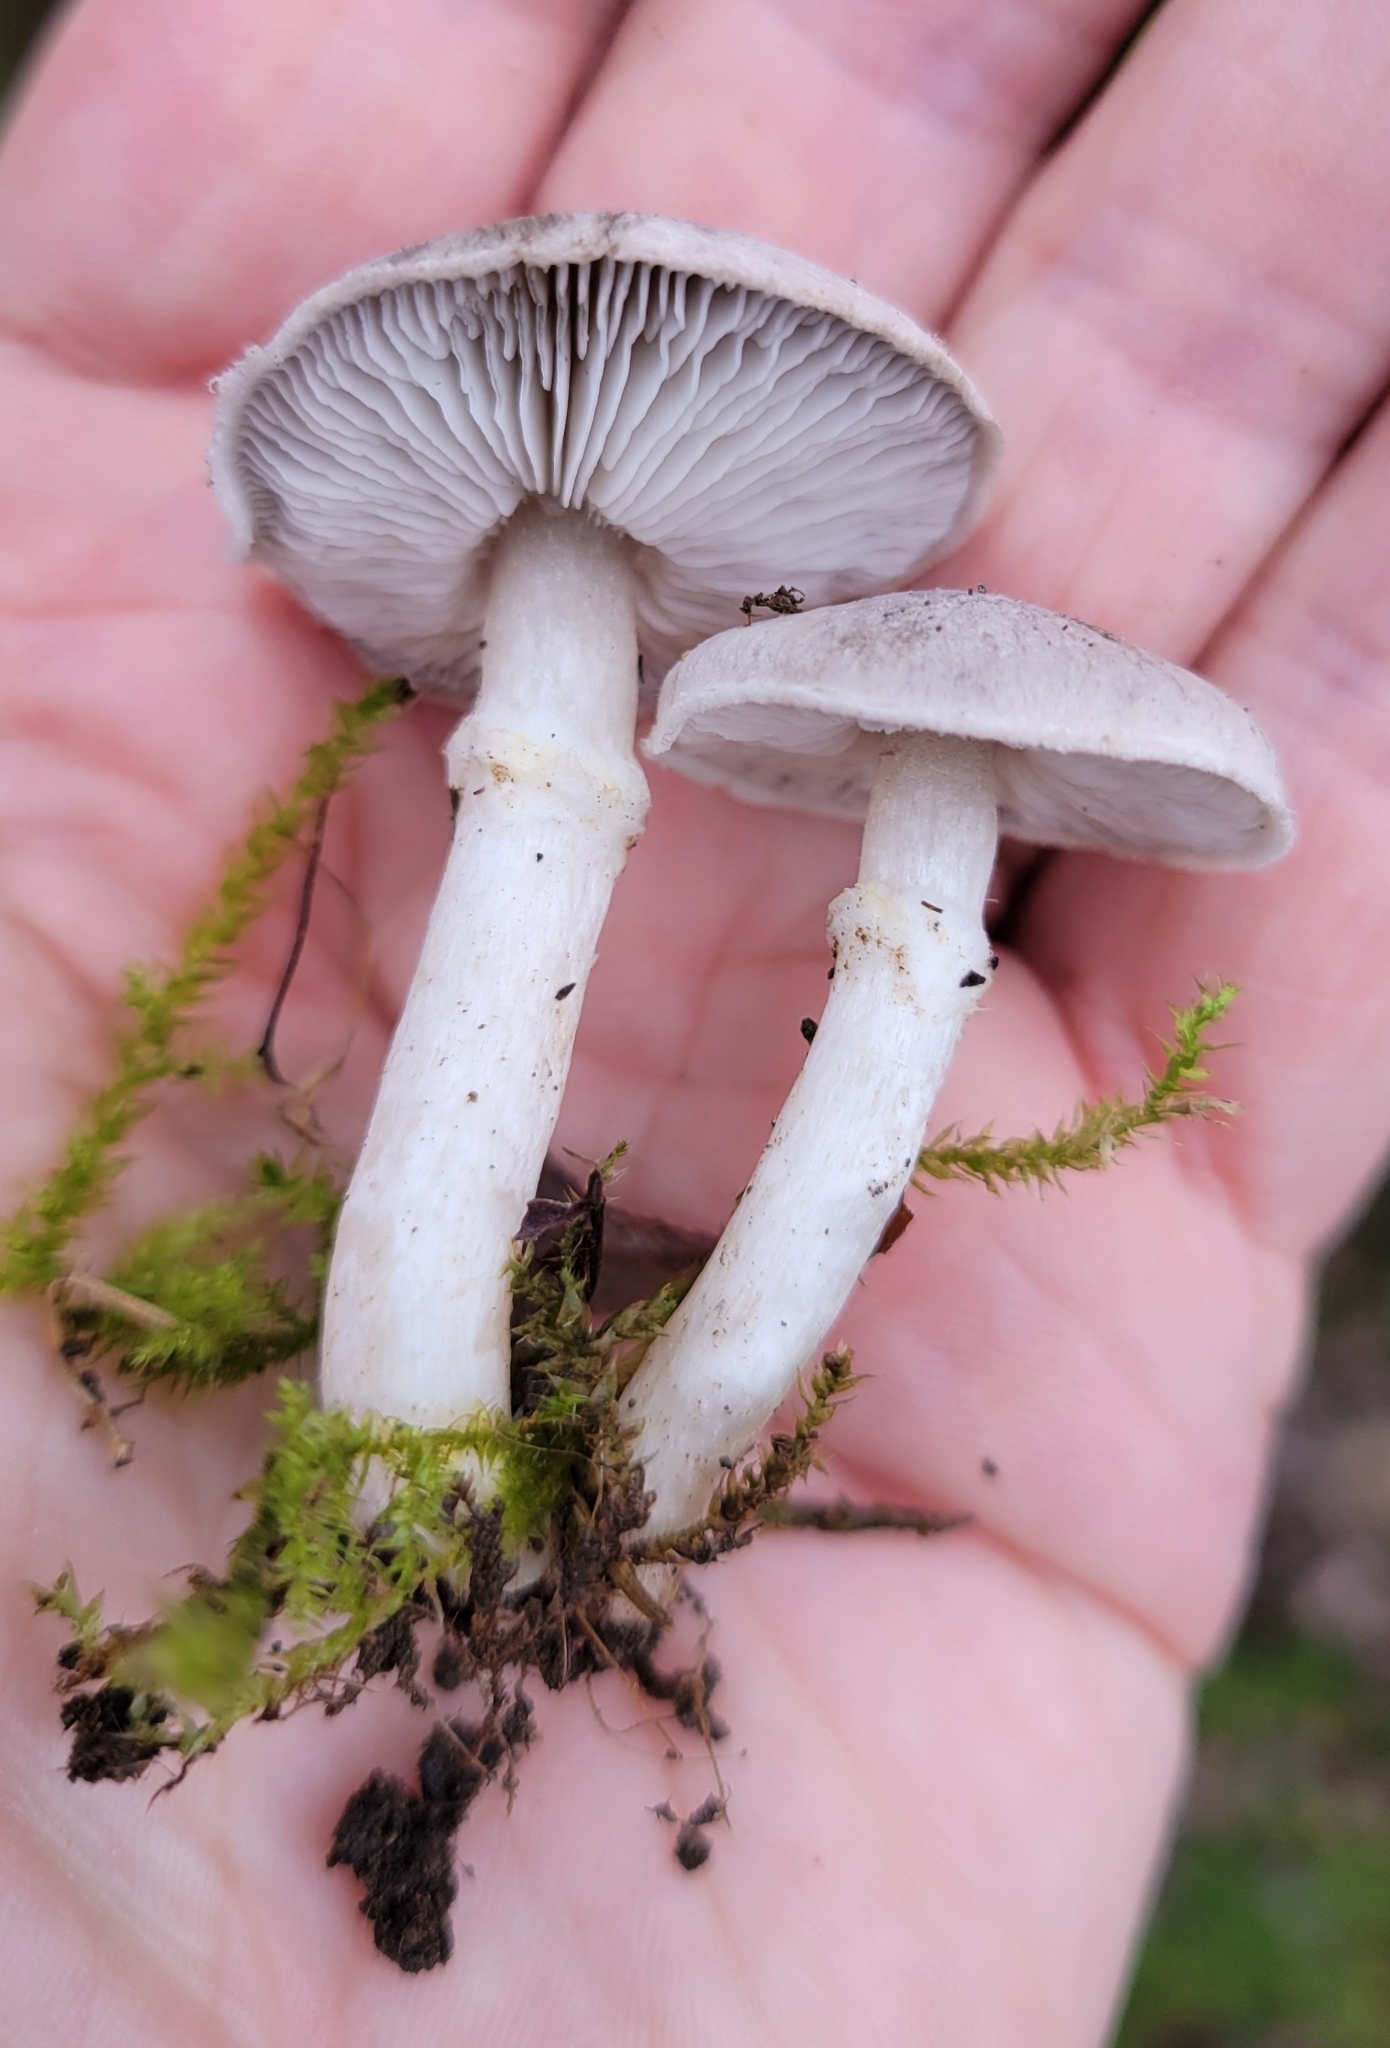
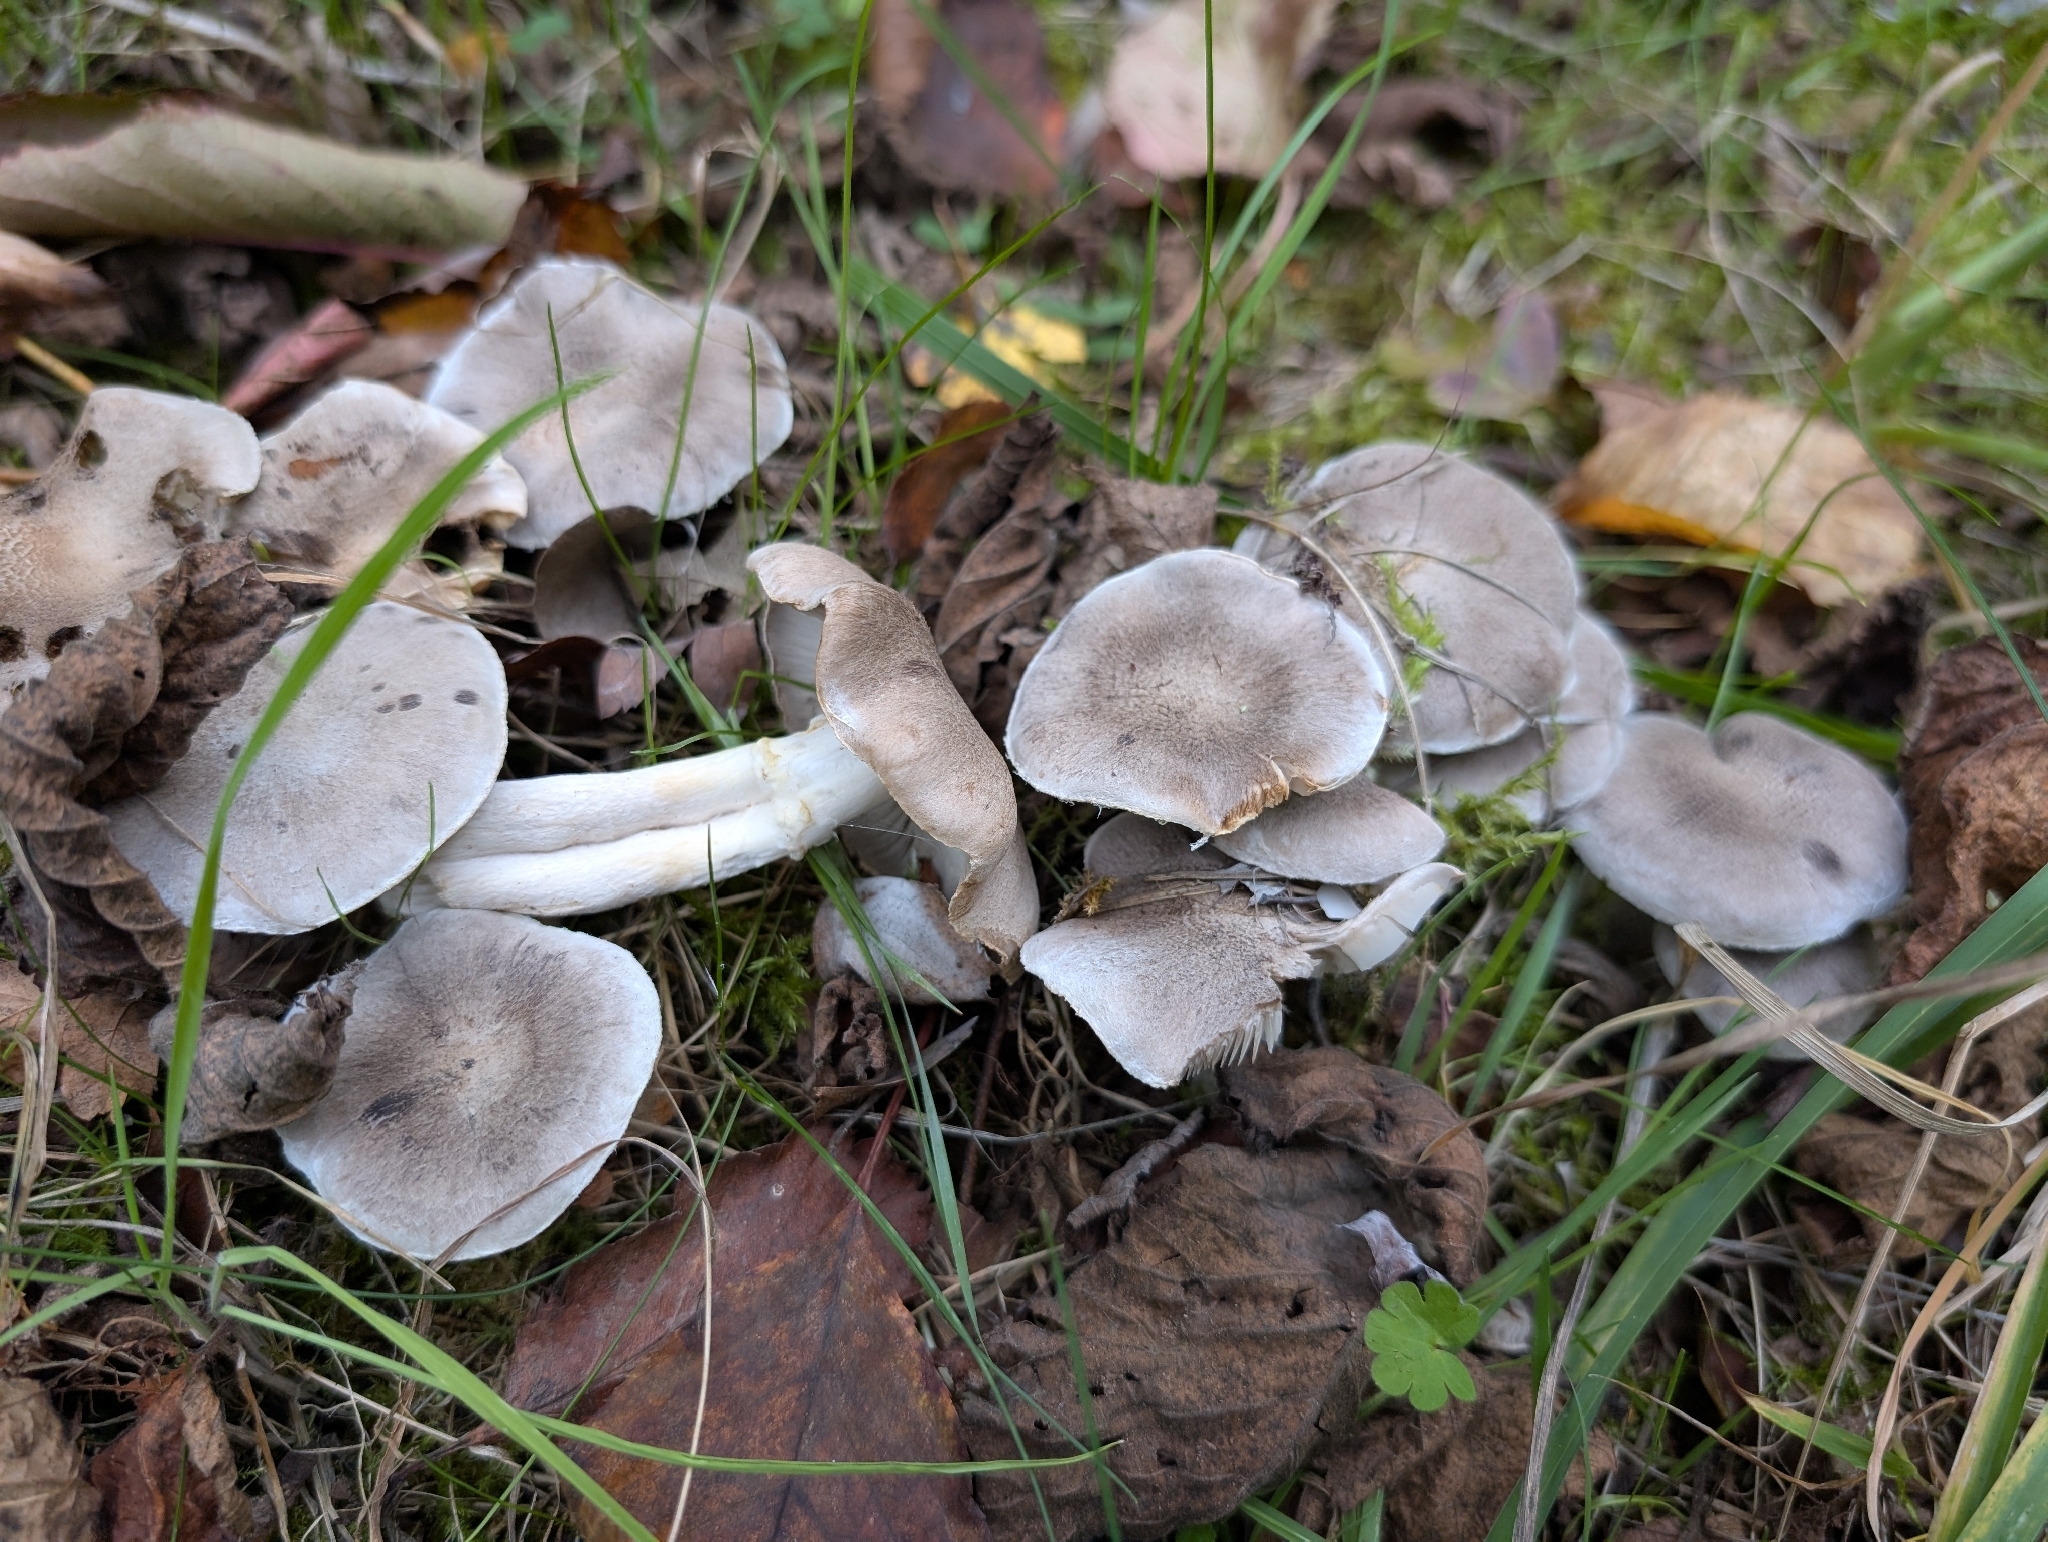


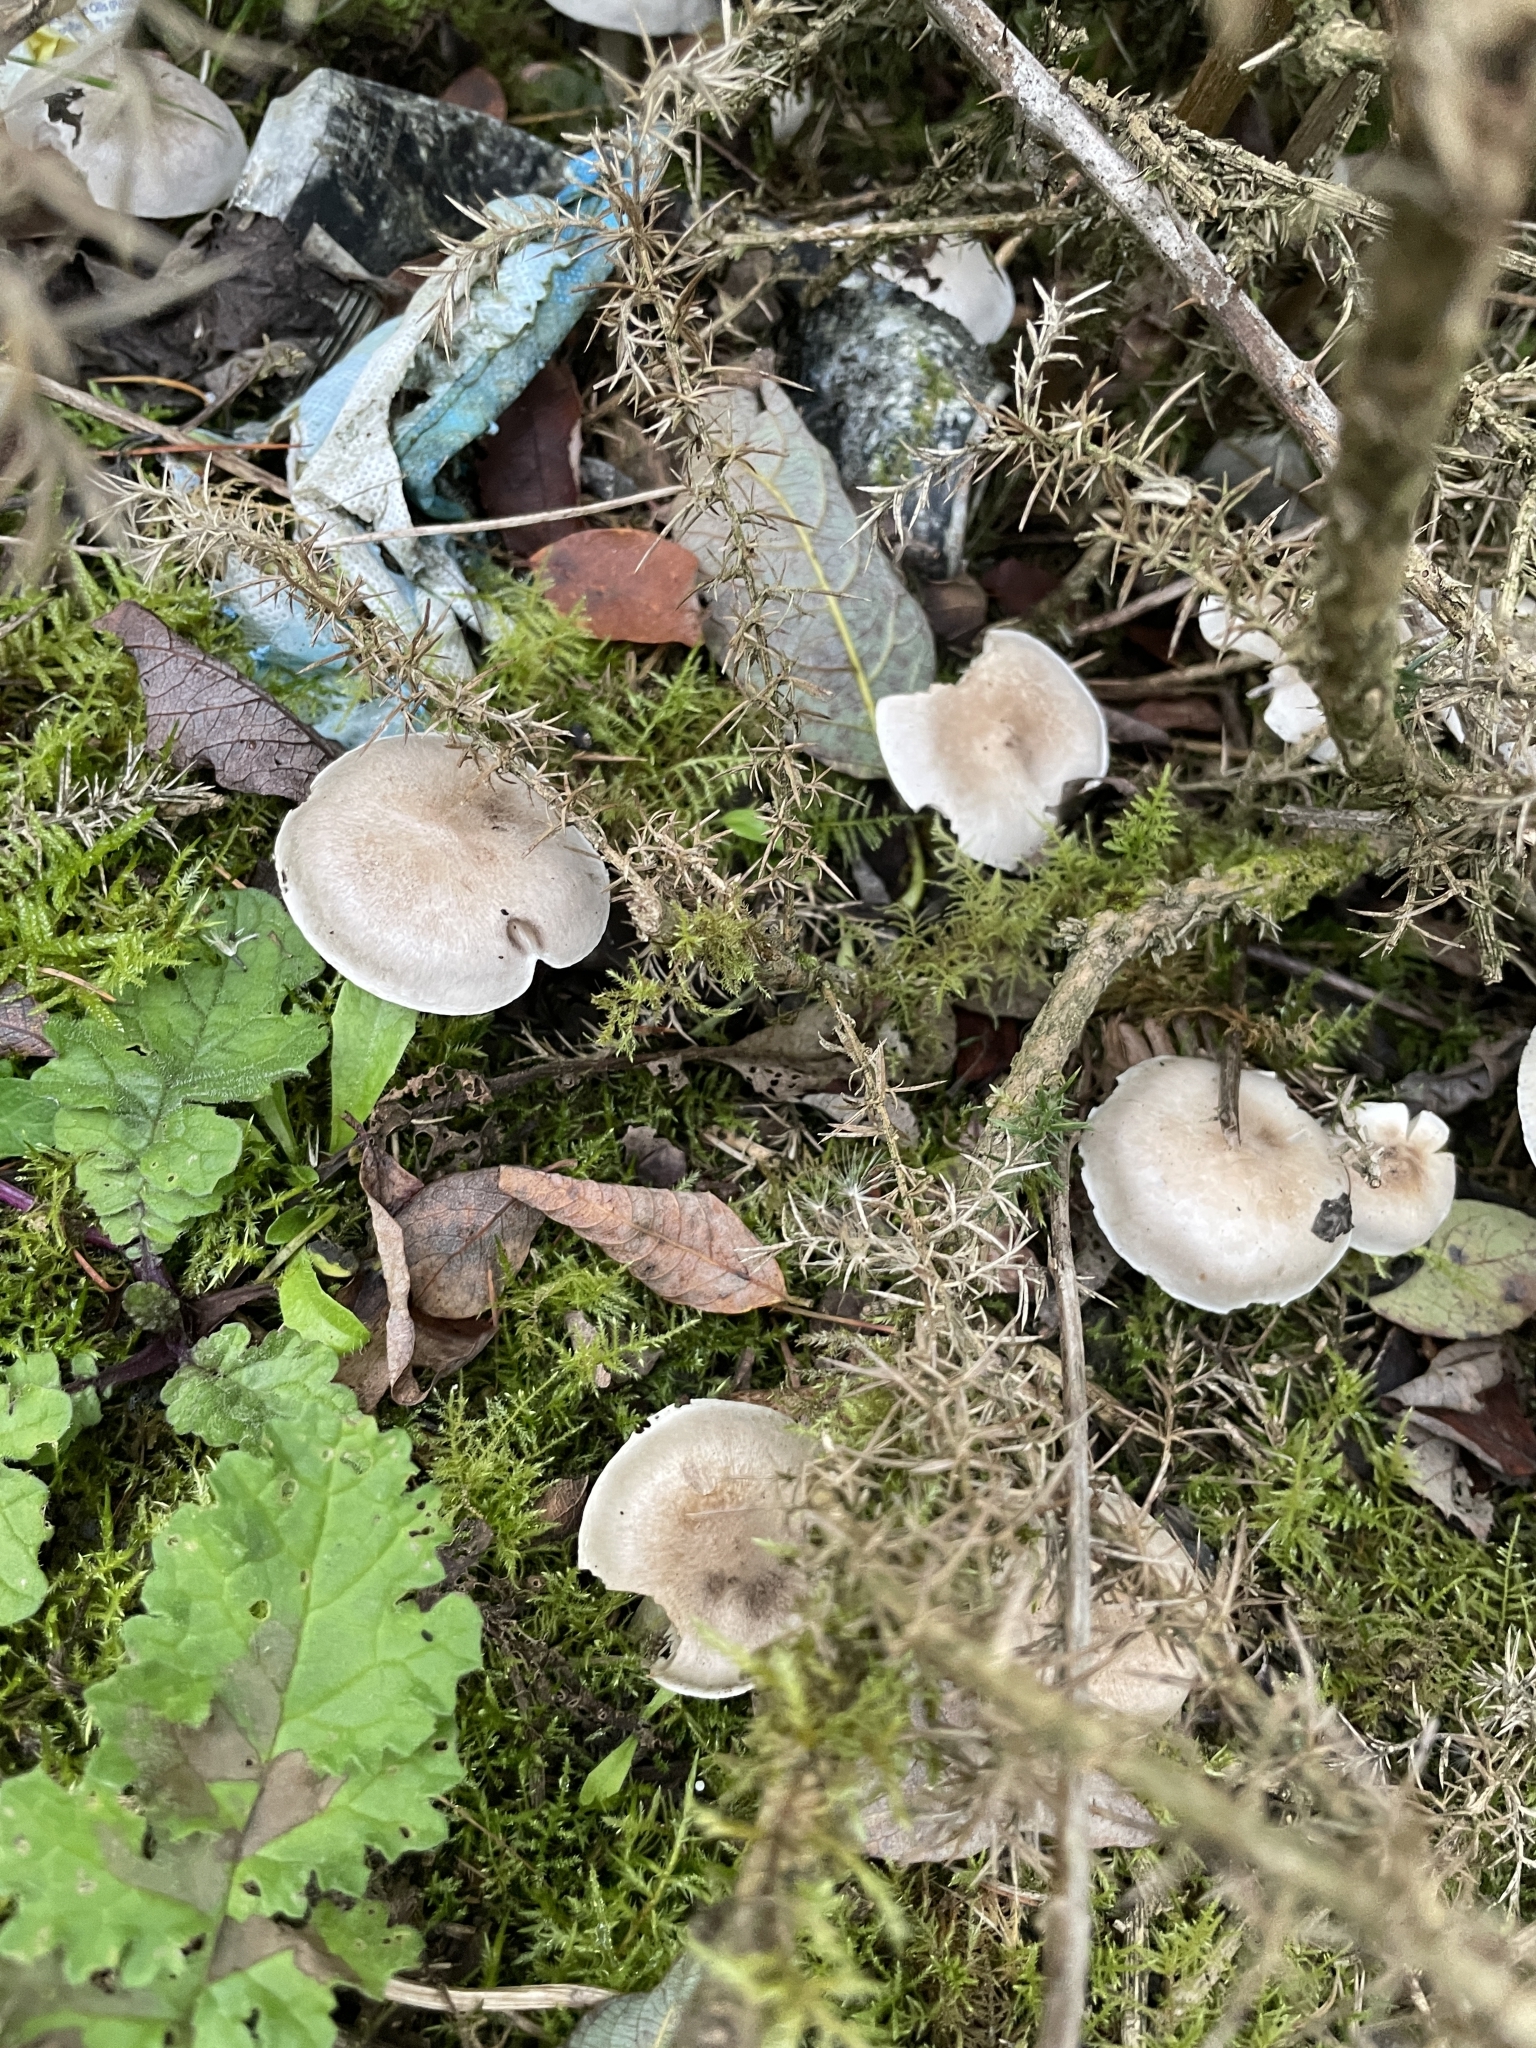
Čirůvka prstencitá je drobnější až středně velká lupenatá houba, která je význačná přítomností vatovitého prstenu či prstencovité zóny na třeni. Klobouk je světle šedý až šedohnědý, jemně plstnatý až vláknitě šupinkatý. Lupeny jsou bělavé, ve stáří slabě žloutnoucí. Dužnina vydává výraznou moučnou vůni i chuť. Tento druh žije v mykorhizní symbióze výhradně s vrbami a vyskytuje se na vlhkých a světlých stanovištích.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- Tvar klobouku: polokulovitý nebo zvoncovitý.
Tvar klobouku: plochý.
Tvar klobouku: vyklenutý.
Tvar klobouku: vyklenutý (zploštělý profil). - Povrch klobouku
- Povrch klobouku: suchý.
- Pokryv klobouku
- Pokryv klobouku: plstnatý.
Pokryv klobouku: šupinatá (jemné šupiny).
Pokryv klobouku: šupinatá (jemné šupiny, šedohnědý pokryv).
Pokryv klobouku: šupinatá (jemné šupiny, olivové).
Pokryv klobouku: šupinatá (hnědé).
Pokryv klobouku: šupinatá (šedohnědý pokryv). - Lesk povrchu klobouku
- Lesk povrchu klobouku: matný.
- Barva klobouku
- Barva klobouku: šedavý.
Barva klobouku: bílý.
Barva klobouku: šedý (světlý odstín).
Barva klobouku: šedohnědý. - Postavení okraje
- Postavení okraje: podvinutý.
u mladých plodnic: Postavení okraje: zahnutý dovnitř. - Obrys okraje klobouku
- Obrys okraje klobouku: zvlněný.
- Průměr klobouku
- Průměr klobouku je 30–60 mm.
- Střed klobouku
- Střed klobouku: s výrazným hrbolem (tupý hrbolek, někdy).
Střed klobouku: s výrazným hrbolem. - Částečný závoj
- u mladých plodnic: Částečný závoj: přítomný (od okraje klobouku ke třeni, bělavá, pavučinovitá).
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: lupeny.
Lupeny u třeně
- Připojení hymenoforu ke třeni
- Připojení hymenoforu ke třeni: přirostlý k třeni (lupeny).
Připojení hymenoforu ke třeni: volný od třeně (lupeny). - Profil hymenoforu u třeně
- Profil hymenoforu u třeně: vykrojený u třeně (lupeny).
- Sbíhavost hymenoforu na třeň
- Sbíhavost hymenoforu na třeň: sbíhavý zoubkem (lupeny).
- Přirozená barva povrchu lupene
- Přirozená barva povrchu lupene: bělavá.
Přirozená barva povrchu lupene: šedý.
u zralých plodnic: Přirozená barva povrchu lupene: žlutavý.
Přirozená barva povrchu lupene: bělavá.
Přirozená barva povrchu lupene: krémový. - Rozestup lupenů
- Rozestup lupenů: středně husté.
Rozestup lupenů: blízko u sebe. - Výška lupenů
- Výška lupenů: 2–4 mm.
- Přítomnost krátkých lupenů
- Přítomnost krátkých lupenů: přítomný.
- Počet délkových řad lupénků
- Počet délkových řad lupénků: 2–3.
Třeň a báze
- Tvar třeně
- Tvar třeně: válcovitý.
- Barva třeně
- Barva třeně: bělavá nebo šedohnědý.
Barva třeně: bílý nebo bělavá.
Barva třeně: bílý. - Pokryv povrchu třeně
- Pokryv povrchu třeně: Plstnatá a vláknitá.
v horní části třeně: Pokryv povrchu třeně: vločkatá nebo šupinatá. - Vnitřek třeně
- Vnitřek třeně: plný.
- Délka třeně
- Délka třeně: 30–80 mm.
- Průměr třeně
- Průměr třeně: 5–15 mm.
Prsten
- Přítomnost prstenu
- Přítomnost prstenu: přítomný.
Přítomnost prstenu: přítomný.
Přítomnost prstenu: přítomný. - Stavba materiálu prstenu
- Stavba materiálu prstenu: vatovitý.
Stavba materiálu prstenu: vatovitý.
Stavba materiálu prstenu: vatovitý. - Poloha prstenu
- Poloha prstenu: v horní části třeně.
Poloha prstenu: v horní části třeně. - Barva prstenu
- Barva prstenu: bělavá.
Barva prstenu: bílý.
Dužnina
- Barva dužniny
- Barva dužniny: bělavá.
Barva dužniny: bílý nebo krémový. - Pevnost dužniny
- Pevnost dužniny: pevný.
- Struktura dužniny
- Struktura dužniny: vláknitý (dužnina třeně).
- Vůně dužniny
- Vůně dužniny: moučný (celá plodnice).
Vůně dužniny: příjemný (dužnina). - Tloušťka dužniny klobouku
- Tloušťka dužniny klobouku: 2–3 mm.
- Chuťové tóny
- Chuťové tóny: moučný.
Kde a kdy roste
- Stanoviště
- Stanoviště: les blíže neurčeného typu.
Stanoviště: jehličnatý les nebo smíšený les.
Stanoviště: listnatý les, smíšený les, lužní les, okraj lesa, křoviny, ruderální nebo městské stanoviště, louka nebo ovocný sad. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: ve skupinách.
Způsob růstu plodnic: jednotlivě nebo roztroušené skupiny.
Způsob růstu plodnic: ve skupinách, roztroušené skupiny nebo v kruzích. - Četnost výskytu
- Doba růstu
- Plodnice se objevují od října do prosince (pozorované období, roky pozorování: 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023, měsíce pozorování: 10, 11, 12).
- Oblast výskytu
- Potwierdzono występowanie w Polsce.
Jedlost a kuchyně
- Jedlost
- Jedlý
- Nutná úprava
- Vyžaduje úpravu
Právo
- Ochrana
- Není uveden v polském seznamu chráněných druhů hub.
- Prodej
- V Polsku není uveden v seznamu hub povolených k prodeji.
FAQ
S jakými dřevinami tvoří čirůvka prstencitá mykorhizu?
Tvoří striktní mykorhizní vazbu výhradně s vrbami, a to jak se stromovými, tak s keřovými druhy.
Kde se s tímto druhem v přírodě nejčastěji setkáme?
Vyskytuje se na vlhkých loukách, březích vodních toků, v pískovnách, lomech a vrbových křovinách.
V jakém období roku čirůvka prstencitá roste?
Hlavní doba růstu nastává od konce léta do pozdního podzimu, nejčastěji od srpna do listopadu.
Jaký znak je pro tento druh nejtypičtější?
Nápadným znakem je zřetelný vatovitý prsten nebo prstencovitý pás v horní části třeně.
Je čirůvka prstencitá jedlá houba?
V atlasech je uváděna jako jedlá, ale novější práce nedoporučují skupinu T. terreum. Jde o rozdílná hodnocení, toxicita čirůvky prstencité však prokázána nebyla. Sbírá se zřídka.
Jak voní dužnina čirůvky prstencité?
Čerstvá dužnina má charakteristickou, poměrně intenzivní okurkově moučnou vůni i chuť.
Je nutné tuto houbu před konzumací vařit?
Ano, stejně jako většina čirůvek vyžaduje dostatečnou tepelnou úpravu po dobu alespoň 15 minut.
Má čirůvka prstencitá nějaký význam v lidové tradici?
Nemá, v historickém folklóru ani lidové mytologii neexistují žádné doložené zmínky či symbolika.
Využívá se tento druh v lidovém řemesle nebo medicíně?
Ne, v minulosti ani v současnosti nemá žádné doložené nekulinární, řemeslné ani léčebné využití.
Jak rozsáhlý je zeměpisný areál tohoto druhu?
Roste v mírném pásmu Evropy, v některých částech Asie a ojediněle je uváděna ze Severní Ameriky.
Nadšenec
Názvy a historie
- Platné národní jméno
- Gąska wierzbowa
- Platné vědecké jméno
- Tricholoma cingulatum
- Další jména
- gąska obuta, čirůvka kroužkatá
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách zvedněte klobouk a prohlédněte si výtrusný prach.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: bílý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: elipsoidní. Tvar výtrusu: válcovitý. Tvar výtrusu: elipsoidní (široký). Tvar výtrusu: elipsoidní. Tvar výtrusu: elipsoidní (protáhlý).
- Povrch výtrusu
- Povrch výtrusu: hladký. Povrch výtrusu: hladký.
- Rozměry výtrusu
- Délka 4–7,2 µm, šířka 2,5–4,2 µm.
- Rozměry výtrusu
- Délka 5,2 µm, šířka 3,1 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: Salix repens (obecný seznam partnerů).
- Způsob výživy
- Způsob výživy: ektomykorhizní.
Mimokulinární využití
Pro čírovku kroužkatou (Tricholoma cingulatum) není doloženo žádné praktické nekulinářské využití, a to ani v historickém kontextu, ani v moderní praxi. Druh nebyl nikdy předmětem lidového léčitelství a neexistují záznamy o jeho uplatnění v tradiční medicíně či farmacii. Plodnice neobsahují barviva vhodná k řemeslnému barvení vlny či textilu a houba se nevyužívá ani k výrobě pigmentů. Druh nenachází uplatnění ani v biotechnologiích, technických oborech či biodegradaci. Přestože jde o mykorhizního symbionta vázaného na různé druhy vrb (Salix spp.), který plní přirozenou ekologickou úlohu v půdních společenstvech, tento biologický vztah nebyl převeden do praktické aplikace (například v podobě komerčních mykorhizních přípravků pro lesnictví nebo rekultivace). Z praktického hlediska mimo kuchyni tak houba nemá žádný přímý užitek pro člověka a její význam spočívá výhradně v mykologii a ochraně biodiverzity.
Historie a kultura
Čirůvka prstencitá nemá žádnou doloženou historii v lidových tradicích, folklóru ani v mytologii. Na rozdíl od nápadných a hojně sbíraných hub se tento druh nikdy neotiskl do lidových pověstí a v tradičních venkovských kulturách neměl ani vlastní specifické lidové pojmenování. Její kulturní stopa je výhradně vědecká a váže se k rozvoji evropské systematické mykologie v 19. a 20. století.
Prvotní vědecký popis pochází z roku 1830 od Eliase Magnuse Friese, který druh popsal jako Agaricus cingulatus (Almfelt ex Fr.). Do rodu Tricholoma jej pod platným jménem Tricholoma cingulatum přeřadil Ernst Jacobasch. V průběhu 20. století se stala předmětem odborného zájmu v dílech badatelů mapujících mykoflóru vrbových biotopů. V mykologických atlasech 20. století byla ceněna především jako morfologicky zajímavý příklad čirůvky vybavené závojem a prstenem, což u tohoto rodu představuje relativně neobvyklý diagnostický znak.
Jedlost a bezpečnost
Čirůvka prstencitá je v mykologických atlasech tradičně uváděna jako jedlá houba, avšak její praktický význam pro sběr je nepatrný. Novější odborné práce sice nedoporučují konzumaci druhů z okruhu čirůvky zemní (Tricholoma terreum), jedná se však o rozdílná hodnocení, která neprokazují toxicitu samotné čirůvky prstencité. Dužnina klobouku je tenká a křehká, s výraznou moučnou až okurkově moučnou vůní a chutí, jež po tepelné úpravě částečně slábne, přesto nemusí každému vyhovovat. Z hlediska bezpečnosti je nezbytná důkladná tepelná úprava; syrové plodnice obsahují těžko stravitelné látky a mohou způsobit žaludeční nevolnost či trávicí potíže. Doporučuje se vaření či dušení po dobu nejméně patnácti minut. Sbírat lze pouze mladé a pevné plodnice, protože starší kusy rychle podléhají zkáze a mohou nepříjemně páchnout. Vzhledem k častému růstu v antropogenních biotopech, posttěžebních lokalitách nebo podél cest existuje také zvýšené riziko akumulace těžkých kovů, proto je nutné vyhýbat se sběru na znečištěných místech.
Stanoviště a výskyt
Čirůvka prstencitá je mykorhizní houba mírného pásma, jejíž výskyt je vázán na přítomnost vrb. Rozšířena je v západní, střední i severní Evropě, lokálně zasahuje do mírných pásem Asie a ojediněle bývá uváděna také ze Severní Ameriky. Její výskyt je přísně limitován ekologickými nároky hostitelských dřevin rodu Salix. Roste pod vrbou jívou, vrbou bílou, vrbou křehkou i pod nízkými keřovými vrbami na rašeliništích a v alpinské tundře.
Stanovištěm tohoto druhu jsou především vlhká a prosvětlená místa, jako jsou břehy rybníků, potoků a řek, podmáčené louky, okraje lužních lesů, ale také člověkem ovlivněná ruderální a těžební prostranství. Hojně osidluje rekultivované plochy, opuštěné pískovny, hliniště a štěrkovny, kde křovité vrby působí jako pionýrské dřeviny. Fruktifikační období začíná na sklonku léta v srpnu a vrcholí v průběhu září a října. V příznivých podzimních podmínkách s mírným průběhem počasí lze čerstvé plodnice nacházet až do konce listopadu, než půda promrzne.
Zdroje
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Výzkumník
Jedlost a kuchyně
Zdrojová zjištění: jedlost, konzumace a využití
- Jedlost
- Jedlý — zdroj určení
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Kuchyňské využití: V atlasech bývá označována jako jedlá; aktuální skupinová výhrada zachována v Badateli.
- Požadovaná úprava
- Vyžaduje úpravu
FAQ gatunku: obróbka termiczna · literal_statements/0 a/1: požadavek na tepelnou úpravu ve FAQ. Jedná se o záznam redakčního obsahu, nikoli výsledek toxikologického experimentu.
Vědecké názvy a taxonomie
- Platné vědecké jméno
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[29] [32]
Ekologie a rozšíření
- Četnost výskytu
- Nizozemsko: Četnost výskytu: hojný. [17]
Laboratorní diagnostika
Strukturované údaje
Bazidie
Hymeniální cystidy
Ostatní laboratorní znaky
- Délka
- Délka: 35–150 µm. [8]
- Tloušťka stěny
- Tloušťka stěny: 1 µm (přibližná hodnota). [8]
Tloušťka stěny: 0,5–1 µm (přibližná hodnota). [8] - Tloušťka stěny — kvalitativní posouzení
- Tloušťka stěny — kvalitativní posouzení: tenkostěnný. [33]
Tloušťka stěny — kvalitativní posouzení: tenkostěnný. [8]
Tloušťka stěny — kvalitativní posouzení: tlustostěnný (mírně). [8] - Stavba subhymenia
- Stavba subhymenia: vláknitá. [8]
Pokožka klobouku
- Optický vzhled hyf pokožky klobouku
- Optický vzhled hyf pokožky klobouku: hyalinní. [8]
- Uspořádání hyf pokožky klobouku
- Uspořádání hyf pokožky klobouku: paprsčitý. [8]
Uspořádání hyf pokožky klobouku: propletené. [8] - Délka elementů pokožky klobouku
- Délka elementů pokožky klobouku: 50–180 µm. [33]
- Šířka prvků pokožky klobouku
- Šířka prvků pokožky klobouku: 4–10 µm. [8]
Šířka prvků pokožky klobouku: 4–8 µm. [33]
Reakce s činidly
Výtrusy
- Průměrný poměr délky a šířky výtrusu
- Průměrný poměr délky a šířky výtrusu: 1,7 (směrodatná odchylka: 0,15, průměr). [8] [7]
- Přítomnost apikulu bazidiospory
- Přítomnost apikulu bazidiospory: přítomný (poměrně velký). [8]
- Barva výtrusů pod mikroskopem
- Barva výtrusů pod mikroskopem: hyalinní. [5]
Barva výtrusů pod mikroskopem: hyalinní. [8] - Délka výtrusu
- Délka výtrusu: 4,5–6 µm. [5]
Délka výtrusu: 5,5–7,2 µm. [33]
Délka výtrusu: 4–6,5 µm. [8]
Délka výtrusu: 5,2 µm (průměr). [8] - Poměr délky a šířky výtrusu
- Poměr délky a šířky výtrusu: 1,4–2. [8]
Poměr délky a šířky výtrusu: 1,25–1,38. [33] - Tvar výtrusu
- Tvar výtrusu: elipsoidní. [5]
Tvar výtrusu: válcovitý. [5]
Tvar výtrusu: elipsoidní (široký). [33]
Tvar výtrusu: elipsoidní. [8]
Tvar výtrusu: elipsoidní (protáhlý). [8] - Tloušťka stěny výtrusu
- Tloušťka stěny výtrusu: tenkostěnný. [8]
Trama hymenoforu
Materiál a metody výzkumu
Mikroskopická data — zdroj a omezení
Materiál: Vzorek [61/3/2]: 61 výtrusů z 3 plodnic a 2 sběrů. Soubor měření nebyl ztotožněn s úplným seznamem položek zkoumaných v publikaci.
Rozsah čtení: Úryvky ze zdrojů.
Přečten byl úryvek ze zdroje; úplný text a metody nebyly ověřeny.
Omezení: Průměr a odchylka vzorku nepředstavují hranice jednotlivého Q.
- Výsledky zaznamenané v pramenech — Počet výtrusů na bazidii
- Liczba zarodników na jednej podstawce wynosi 4. [33] [8]
- Výsledky zaznamenané v pramenech — Šířka hyf tramy
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [33]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Výsledky zaznamenané v pramenech — Délka výtrusu
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [33] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [33]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [33]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [33]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [33]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [33]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [33]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [33]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [33]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [33]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [33]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [33]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [33]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [33]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [33]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [33]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [33]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
Materiál a metody
Indie: Mehmood et al. (2022) popsali dva sběry z Bhimbatu v Drassu, z 19. a 20. srpna 2021, TMKVYPS21-39 a 21–43. Uvedli n = 20 výtrusů bez jednoznačného rozdělení vzorku mezi sběry. Řezy byly zkoumány v 5% KOH a 1% konžské červeni. Trojčlenné zápisy rozměrů a Q byly v původním znění zachovány; při absenci definice střední statistické hodnoty nebyla tato svévolně označena jako průměr. Sekvence OM977115 z 21–39 vykázala 100% podobnost s MW628104. V textu metody uvádějí MEGA-X, zatímco popisek obrázku uvádí MEGA6.0; rozpor zůstává u studie.
Čína: Cui et al. (2026), sekce 74: vzorek [61/3/2] znamená 61 výtrusů z 3 plodnic a 2 sběrů. Nejméně 90% měření délky spadá do 4,5–6 µm a plné krajní hodnoty jsou 4–6,5 µm; šířka má plné krajní hodnoty 2,5–4 µm. Qm 1,7 ± 0,15 je průměr se směrodatnou odchylkou vzorku. Preparáty byly montovány v 5% KOH, konžská červeň byla použita v případě potřeby a amyloidita byla testována Melzerovým činidlem. Pro další struktury byl uveden také fázový kontrast 1000×. Skenovací elektronová mikroskopie (SEM) nebyla tomuto druhu implicitně přiřazena. Obr. 93 pochází z HKAS106635 a sám o sobě neidentifikuje celý vzorek.
Severní Evropa: Heilmann-Clausen et al. (2017) uvádějí v obecné metodice nejméně 20 náhodně vybraných výtrusů na sběr a preparáty v 2% KOH nebo 5–10% NH3. Tomuto druhu nebylo svévolně přiřazeno n = 20 ani obě média současně. Tabulka 1 spojuje pojmenované sběry ze Slovenska, Dánska a Nizozemska s čísly položek a sekvencí; samotné roky a kódy sběrů nevymezují měsíce fruktifikace.
Odečtené lokality
Polsko: Kompletní karta grzyby.pl obsahuje 15 datovaných záznamů GRej, včetně opakovaných potvrzení lokalit. Jde o lokální pozorování z let 2006 až 2023, nikoli o zhodnocení početnosti v celém Polsku. Vybraná data zahrnují říjen, listopad a 6. prosinec 2020 u Dębogóry. Wojewoda (2003), záznam T. cingulatum, popisuje sběr z Batowického hřbitova v Krakově z roku 1998 a uvádí říjen; pod T. ramentaceum cituje historický záznam z Bukového pralesa (Puszcza Bukowa), ze Štětína a okolí. Data publikace nebyla přenesena na data sběru. Vojvodství a přesné lokality bez odpovídajícího společného identifikátoru zůstávají v zachovaném záznamu.
Zahraniční rozsah: V analýze z roku 2017 jsou sběry MC03-252 z Havešové na Slovensku, dánský neotyp MC96-134, další dánský sběr MC96-170 z Borumu a nizozemský MEN95210 z Boekweitveentje v Drenthe. Čínský materiál zahrnuje S’-čchuan (Kchang-ting/Gonggashan, 2700 m; Pching-wu, 2500 m) a Jün-nan (Shangri-La/Wongshui, 3400 m). Indický článek zmiňuje také evropské země na základě starších prací; celé citované knihy nebyly automaticky přečteny a tento seznam nebyl uznán za aktuální úplný areál rozšíření.
Důkaz mykorhizy s vrbou
Zkoumaný kořen: Leake et al. (2004) popsali ektomykorhizní kořenové špičky vrby plazivé Salix repens v Newborough Warren. Byly zkoumány tři skupiny vzorků kořenů; autoři pozorovali mykorhizní pláště a spoje rhizomorf a vzorky vykazovaly profil ITS-RFLP typu I shodný se studovaným symbiontem Monotropa. Jde o důkaz přesahující pouhé sousedství stromů. Tabulka 5 uvádí pro tyto tři vzorky Salix „nd“ pro mtLSU a oblast ITS, což tedy neznamená tři nezávisle sekvenované vzorky. Druh společného typu byl určen na základě reprezentativních sekvencí a srovnání s plodnicemi.
Rozsah partnera: Tento přímý důkaz se týká Salix repens. Záznam týkající se Salix caprea v Millers Dale popisuje Monotropa rostoucí pod vrbou a nepředstavuje samostatnou analýzu kořenů této vrby. V datech je zaznamenán dostupný rod Salix; přesný název vrby plazivé zůstává u studie. Touto metodou nebyly potvrzeny všechny druhy vrb ani jiné stromy zmiňované v popisech stanovišť.
Screening extraktů
Materiál 46/07: Otto (2017), příloha A3, uvádí materiál T. cingulatum 46/07 označený jako „fr“. Pro methanolové a ethylacetátové extrakty tabulka vykazuje absenci inhibice ve třech testech označených SEPTTR, PHYTIN a CLADCU. Ve sloupci BOTRCI je „n.t.“ — netestováno; tento záznam nebyl změněn na negativní výsledek. Jde o kvalitativní výsledky konkrétního materiálu a testů bez vyvozování závěrů o užitkovém nebo léčebném využití druhu.
Limity dat: Z přečteného výtahu nebyly stanoveny koncentrace, počet opakování, číselný koncový bod ani číslo položky v herbáři a místo sběru. Nebyly automaticky rozluštěny všechny kódy testovacích organismů. Přímá adresa repozitáře vrátila HTML stránku místo PDF; zachovaný odečet tabulky není prohlášením o přečtení celé disertační práce. Výsledky nebyly přeneseny na tepelně upravené plodnice, bezpečnost potravin ani klinickou účinnost.
Složení materiálu z Kargilu — rozsah studie
Materiál a replikace: Mayirnao et al. (2025) sebrali zralé plodnice v Drass v okrese Kargil v září 2022, v nadmořské výšce 3276 m n. m. Byl oddělen profil metabolitů GC–MS, stanovení sušiny a molární poměry. Tři opakování stanovení neurčují počet nezávislých plodnic. S podrobnými protokoly a molekulární identifikací autoři odkazují na suplement; suplement nebyl čten.
Význam procent: Tabulka 1 uvádí procentuální složení profilu metabolitů GC–MS. Nejedná se o hmotnostní procento složky v plodnici. Každý údaj sloupce T. cingulatum i zdrojové SD byly zachovány. Zvlášť zůstávají výsledky nedetekce: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Nedetekce danou metodou neznamená absolutní nepřítomnost látky. Kyselina hydroxyglutarová se v tabulce vyskytuje ve dvou různých řádcích; odlišný kvantitativní záznam a nedetekce nebyly sloučeny.
Antioxidační testy: V sekci 3.10 autoři uvedli pro T. cingulatum IC50 = 9,03 mg/ml v testu vychytávání peroxidu vodíku a 5,52 mg/ml v testu redukce hexakyanoželezitanu draselného. Jedná se o výsledky testů, nikoli o potvrzení léčby, suplementace nebo bezpečnosti konzumace. Hlavní text neřeší všechny podrobnosti protokolu testů; nebyly nahrazeny testem DPPH ani jiným koncovým bodem. V abstraktu byla vyzdvižena redukční aktivita V. bombycina, navzdory nižší hodnotě uvedené pro T. cingulatum v sekci výsledků.
Ověření výskytu — rozsah a omezení
Materiál: Dokładny zapis źródłowy dla BG
Rozsah čtení: Výňatky ze zdrojů.
Byl přečten výňatek ze zdroje; úplný text a metody nebyly ověřeny.
Datum přezkumu: 10.11.2026.
Omezení: Rozsah vychází z uvedeného zdroje; bez rozšiřování na jiné oblasti nebo období.
Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Právní základ a rozsah hodnocení
Předpisy pro lokalitu: Polsko
Podklad pro informace o ochraně
Druh není uveden v přílohách vyhlášky o druhové ochraně hub (Dz.U.2014/1408).
Podklad pro informace o obchodu
Druh není uveden na seznamu pro uvádění na trh nebo výrobu houbových produktů (Dz.U.2026/258,załącznik1); nejedná se o klasifikaci jedlosti.
Analytické výsledky
Samostatné zdrojové analytické výsledky
- Isoleucin — podíl v profilu GC–MS
- Výsledek stanovení je 0,59 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,14 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Leucin — podíl v profilu GC–MS
- Výsledek stanovení je 0,44 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,08 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Lysin — podíl v profilu GC–MS
- Výsledek stanovení je 0,65 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,04 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Fenylalanin — podíl v profilu GC–MS
- Výsledek stanovení je 0,58 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,15 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Threonin — podíl v profilu GC–MS
- Výsledek stanovení je 2,22 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,45 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Valin — podíl v profilu GC–MS
- Výsledek stanovení je 1,12 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,09 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Alanin — podíl v profilu GC–MS
- Výsledek stanovení je 2,64 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,59 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Asparagin — podíl v profilu GC–MS
- Výsledek stanovení je 0,14 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,01 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina asparagová — podíl v profilu GC–MS
- Výsledek stanovení je 0,26 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,07 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina glutamová — podíl v profilu GC–MS
- Výsledek stanovení je 0,98 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,35 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Glycin — podíl v profilu GC–MS
- Výsledek stanovení je 2,11 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,78 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Prolin — podíl v profilu GC–MS
- Výsledek stanovení je 0,59 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,28 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Serin — podíl v profilu GC–MS
- Výsledek stanovení je 1,0 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,14 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Acetyllysin — podíl v profilu GC–MS
- Výsledek stanovení je 0,21 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,03 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Ergothionein — podíl v profilu GC–MS
- Výsledek stanovení je 0,16 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,03 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Glycylprolin — podíl v profilu GC–MS
- Výsledek stanovení je 0,81 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,16 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- 5-oxoprolin — podíl v profilu GC–MS
- Výsledek stanovení je 7,95 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,04 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Adenosin — podíl v profilu GC–MS
- Výsledek stanovení je 0,27 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,1 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Ethanolamin — podíl v profilu GC–MS
- Výsledek stanovení je 1,36 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,28 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Methyladenosin — podíl v profilu GC–MS
- Výsledek stanovení je 0,19 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,01 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Uracil — podíl v profilu GC–MS
- Výsledek stanovení je 0,59 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,22 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Močovina — podíl v profilu GC–MS
- Výsledek stanovení je 1,88 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,12 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Uridin — podíl v profilu GC–MS
- Výsledek stanovení je 1,04 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,17 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Deoxygalaktóza — podíl v profilu GC–MS
- Výsledek stanovení je 0,04 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,01 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Erytróza — podíl v profilu GC–MS
- Výsledek stanovení je 0,2 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,05 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Fruktóza — podíl v profilu GC–MS
- Výsledek stanovení je 1,55 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,41 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Fruktopyranóza — podíl v profilu GC–MS
- Výsledek stanovení je 0,42 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,06 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Talóza — podíl v profilu GC–MS
- Výsledek stanovení je 0,86 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,06 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Trehalóza — podíl v profilu GC–MS
- Výsledek stanovení je 18,67 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,69 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Xylulóza — podíl v profilu GC–MS
- Výsledek stanovení je 0,25 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,08 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- α-mannobióza — podíl v profilu GC–MS
- Výsledek stanovení je 0,28 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,01 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina deoxytetronová — podíl v profilu GC–MS
- Výsledek stanovení je 0,22 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,04 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina glukonová — podíl v profilu GC–MS
- Výsledek stanovení je 1,55 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,26 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina glycerová — podíl v profilu GC–MS
- Výsledek stanovení je 0,62 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,23 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina hydroxyglutarová — podíl v profilu GC–MS
- Výsledek stanovení je 0,29 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,1 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina ribonová — podíl v profilu GC–MS
- Výsledek stanovení je 0,19 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,06 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina xylonová — podíl v profilu GC–MS
- Výsledek stanovení je 0,52 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,11 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Erythritol — podíl v profilu GC–MS
- Výsledek stanovení je 1,28 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,37 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Glucitol — podíl v profilu GC–MS
- Výsledek stanovení je 10,33 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 2,42 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Glycerol — podíl v profilu GC–MS
- Výsledek stanovení je 5,71 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,45 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Mezoerythritol — podíl v profilu GC–MS
- Výsledek stanovení je 0,05 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,03 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Myo-inositol — podíl v profilu GC–MS
- Výsledek stanovení je 1,05 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,2 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Ribitol — podíl v profilu GC–MS
- Výsledek stanovení je 2,36 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,18 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina myristová — podíl v profilu GC–MS
- Výsledek stanovení je 0,65 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,03 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina palmitová — podíl v profilu GC–MS
- Výsledek stanovení je 3,7 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,66 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina stearová — podíl v profilu GC–MS
- Výsledek stanovení je 1,8 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,41 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina olejová — podíl v profilu GC–MS
- Výsledek stanovení je 6,05 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,5 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina palmitoelaidová — podíl v profilu GC–MS
- Výsledek stanovení je 0,22 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,11 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Monooleoylglycerol — podíl v profilu GC–MS
- Výsledek stanovení je 1,47 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,14 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Glycerolmonopalmitát — podíl v profilu GC–MS
- Výsledek stanovení je 0,39 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,11 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina linolová — podíl v profilu GC–MS
- Výsledek stanovení je 5,3 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,08 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina azelaová — podíl v profilu GC–MS
- Výsledek stanovení je 1,12 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,34 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Stigmasterol — podíl v profilu GC–MS
- Výsledek stanovení je 0,11 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,0 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina citronová — podíl v profilu GC–MS
- Výsledek stanovení je 1,77 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,47 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina ethylmalonová — podíl v profilu GC–MS
- Výsledek stanovení je 0,29 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,11 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina fumarová — podíl v profilu GC–MS
- Výsledek stanovení je 1,15 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,13 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina hydroxymalonová — podíl v profilu GC–MS
- Výsledek stanovení je 0,34 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,04 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina maleinová — podíl v profilu GC–MS
- Výsledek stanovení je 4,31 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,64 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina methylmaleinová — podíl v profilu GC–MS
- Výsledek stanovení je 0,07 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,02 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina methyljantarová — podíl v profilu GC–MS
- Výsledek stanovení je 0,23 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,04 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina pyrohroznová — podíl v profilu GC–MS
- Výsledek stanovení je 0,22 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,001 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina šťavelová — podíl v profilu GC–MS
- Výsledek stanovení je 0,15 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,06 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina šikimová — podíl v profilu GC–MS
- Výsledek stanovení je 0,37 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,1 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina jantarová — podíl v profilu GC–MS
- Výsledek stanovení je 1,0 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,17 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Kyselina fosforečná — podíl v profilu GC–MS
- Výsledek stanovení je 0,6 % profilu GC–MS. Hmotnostní základ nebyl ve zdroji uveden. Nejistota: 0,1 % profilu GC–MS (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: GC–MS po derivatizaci MSTFA; procentuální složení profilu metabolitů podle tabulky 1.[36] [37]
- Dusík
- Výsledek stanovení je 12,84 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,35 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: analyzátor CHNS.[36] [37]
- Síra
- Výsledek stanovení je 1,02 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,17 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: analyzátor CHNS.[36] [37]
- Fosfor
- Výsledek stanovení je 0,94 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,03 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: podrobná metoda pro P nebyla v přečtené části metod jednoznačně přiřazena.[36] [37]
- Sodík
- Výsledek stanovení je 22,01 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 3,83 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: plamenová fotometrie.[36] [37]
- Draslík
- Výsledek stanovení je 31,2 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,75 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: plamenová fotometrie.[36] [37]
- Vápník
- Výsledek stanovení je 0,68 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,12 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Hořčík
- Výsledek stanovení je 0,67 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 0,01 mg/g (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Hliník
- Výsledek stanovení je 39,07 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 3,26 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Měď
- Výsledek stanovení je 53,95 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 2,4 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Železo
- Výsledek stanovení je 223,05 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 38,74 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Nikl
- Výsledek stanovení je 22,41 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 3,93 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Chrom
- Výsledek stanovení je 30,92 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 2,94 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: ICP–MS.[36] [37]
- Mangan
- Výsledek stanovení je 55,6 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 5,75 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: ICP–MS.[36] [37]
- Selen
- Výsledek stanovení je 26,43 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 1,09 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: ICP–MS.[36] [37]
- Molybden
- Výsledek stanovení je 61,22 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 5,91 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: ICP–MS.[36] [37]
- Zinek
- Výsledek stanovení je 30,58 mikrogramů na gram. Výsledek se vztahuje k sušině zkoumaného materiálu. Nejistota: 4,77 mikrogramů na gram (směrodatná odchylka). Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: atomová absorpční spektrometrie.[36] [37]
- Molární poměr OA/(Ca+Mg)
- Výsledek stanovení je 0,4. Metoda podle zdroje: molární poměr uvedený autory; OA — kyselina šťavelová, PA — kyselina fytová.[36] [37]
- Molární poměr PA/Fe
- Výsledek stanovení je 0,16. Metoda podle zdroje: molární poměr uvedený autory; OA — kyselina šťavelová, PA — kyselina fytová.[36] [37]
- Molární poměr PA/Ca
- Výsledek stanovení je 0,13. Metoda podle zdroje: molární poměr uvedený autory; OA — kyselina šťavelová, PA — kyselina fytová.[36] [37]
- Molární poměr PA/Zn
- Výsledek stanovení je 6,33. Metoda podle zdroje: molární poměr uvedený autory; OA — kyselina šťavelová, PA — kyselina fytová.[36] [37]
- Celkový protein
- Výsledek stanovení je 312 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: Bradfordova metoda.[36] [37]
- Celkové fenoly — stanovení podle Folina–Ciocalteua
- Výsledek stanovení je 38,33 mg/g. Výsledek se vztahuje k sušině zkoumaného materiálu. Statistika: průměr. n = 3 (opakování uvedená ve zdroji; biochemická měření). Metoda podle zdroje: metoda podle Folina–Ciocalteua; kalibrant není v přečtené části metod jednoznačně uveden.[36] [37]
Ekologické výzkumy
Doplňkové zdroje výskytu
Bulharsko: Assyov (2023) popsal lokalitu v Borovci v pohoří Rila: 8. října 2016 a 13. listopadu 2020, položky SOMF29917 a SOMF30896. Rostly pod Salix caprea a Betula pendula v mladém smíšeném jehličnatém lese; přítomnost břízy na stanovišti není důkazem mykorhizy s břízou. Dva měsíce sběrů neurčují celou sezónu v zemi. Historický bulharský záznam jména T. ramentaceum z roku 1955 autor označil za nejistý, bez nalezené položky.
Slovensko: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), s. 28, uvádí sběr S. Glejdury pod vrbami v arboretu Borová hora ve Zvolenu, 320 m n. m., 11. října 1995. Rok uvádí shrnutí seznamu nálezů z roku 1995. Přečtený záznam potvrzuje říjnové pozorování, nikoli celou slovenskou sezónu. Jméno ve zdroji zachovalo historický zápis autorství.
Velká Británie: Norfolk Fungus Study Group publikuje 20 záznamů z 17 lokalit v letech 1988–2025. Datované záznamy připadají na říjen–prosinec; Felthorpe Woods má sběr z 22. prosince 1988. Databáze zahrnuje mimo jiné Whitlingham Marsh, Horsey Warren, Thetford a Holt. Vazby na vrbu nebo borovici byly zapsány jako pozorované sousedství, bez předpokládaného potvrzení kořenového partnera. Údaje z Norfolku nebyly zobecněny na celou sezónu celé Velké Británie.
Nizozemsko: Atlas NDFF označuje druh jako běžný na základě ověřených pozorování z let 2004–2023. Zvlášť uvádí kategorii zranitelný z červeného seznamu 2008; četnost a kategorie ohrožení popisují odlišné otázky. Poukazuje na písek chudý na humus a vazbu na Salix repens. Fenologický graf je modelován z pozorování 2000–2021; nebyly z něj převzaty nepřečtené číselné hodnoty.
Stanoviště a výskyt
Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Bulharsko | Oblasti nebyly určeny | X–XI — minimální rozsah pozorování |
|
| Čína | S’-čchuan; Jün-nan (Yunnan) | VIII–X — minimální rozsah pozorování |
|
| Česko | Plzeňský kraj; Ústecký kraj | VII–XI |
|
| Dánsko | Oblasti nebyly určeny | Neurčeno |
|
| Velká Británie | Oblasti nebyly určeny | X–XII — minimální rozsah pozorování |
|
| Indie | Ladak; Drass, Ladak; Kargil, Ladak | VIII — minimální rozsah pozorování | |
| Nizozemsko | Oblasti nebyly určeny | Neurčeno |
|
| Polsko | Lodžské vojvodství; Malopolské vojvodství; Podleské vojvodství; Západopomořanské vojvodství; Pomořské vojvodství; Siemianowice Śląskie; Lubušské vojvodství | X–XII — minimální rozsah pozorování |
|
| Slovensko | Oblasti nebyly určeny | X — minimální rozsah pozorování |
|
Zdroje
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- ŚredniQ i odchylenie standardowe próby
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka