
Съедобный

Требует кулинарной обработки

Укажите местоположение, чтобы увидеть данные для своего региона.
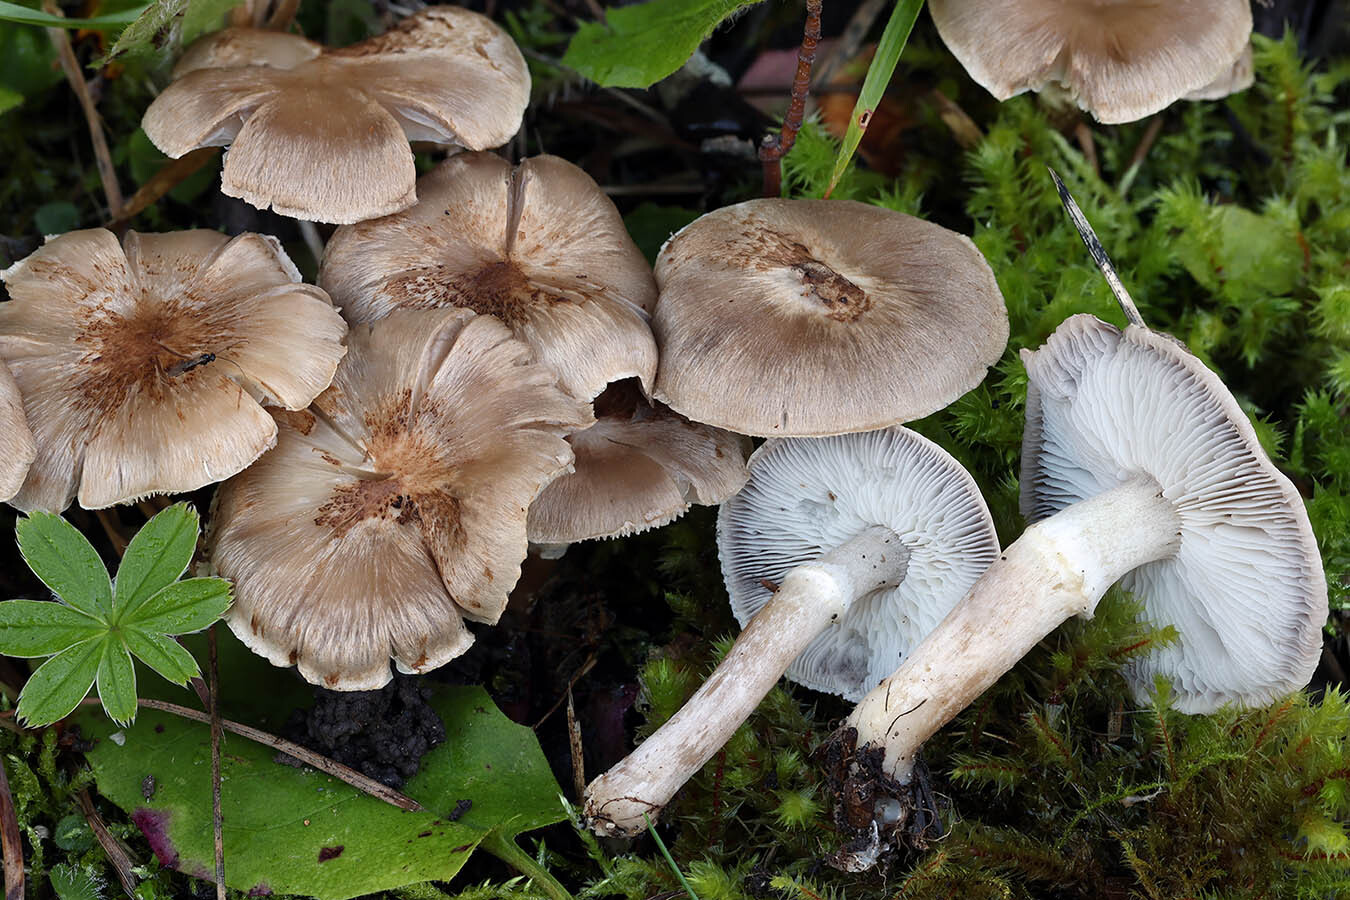
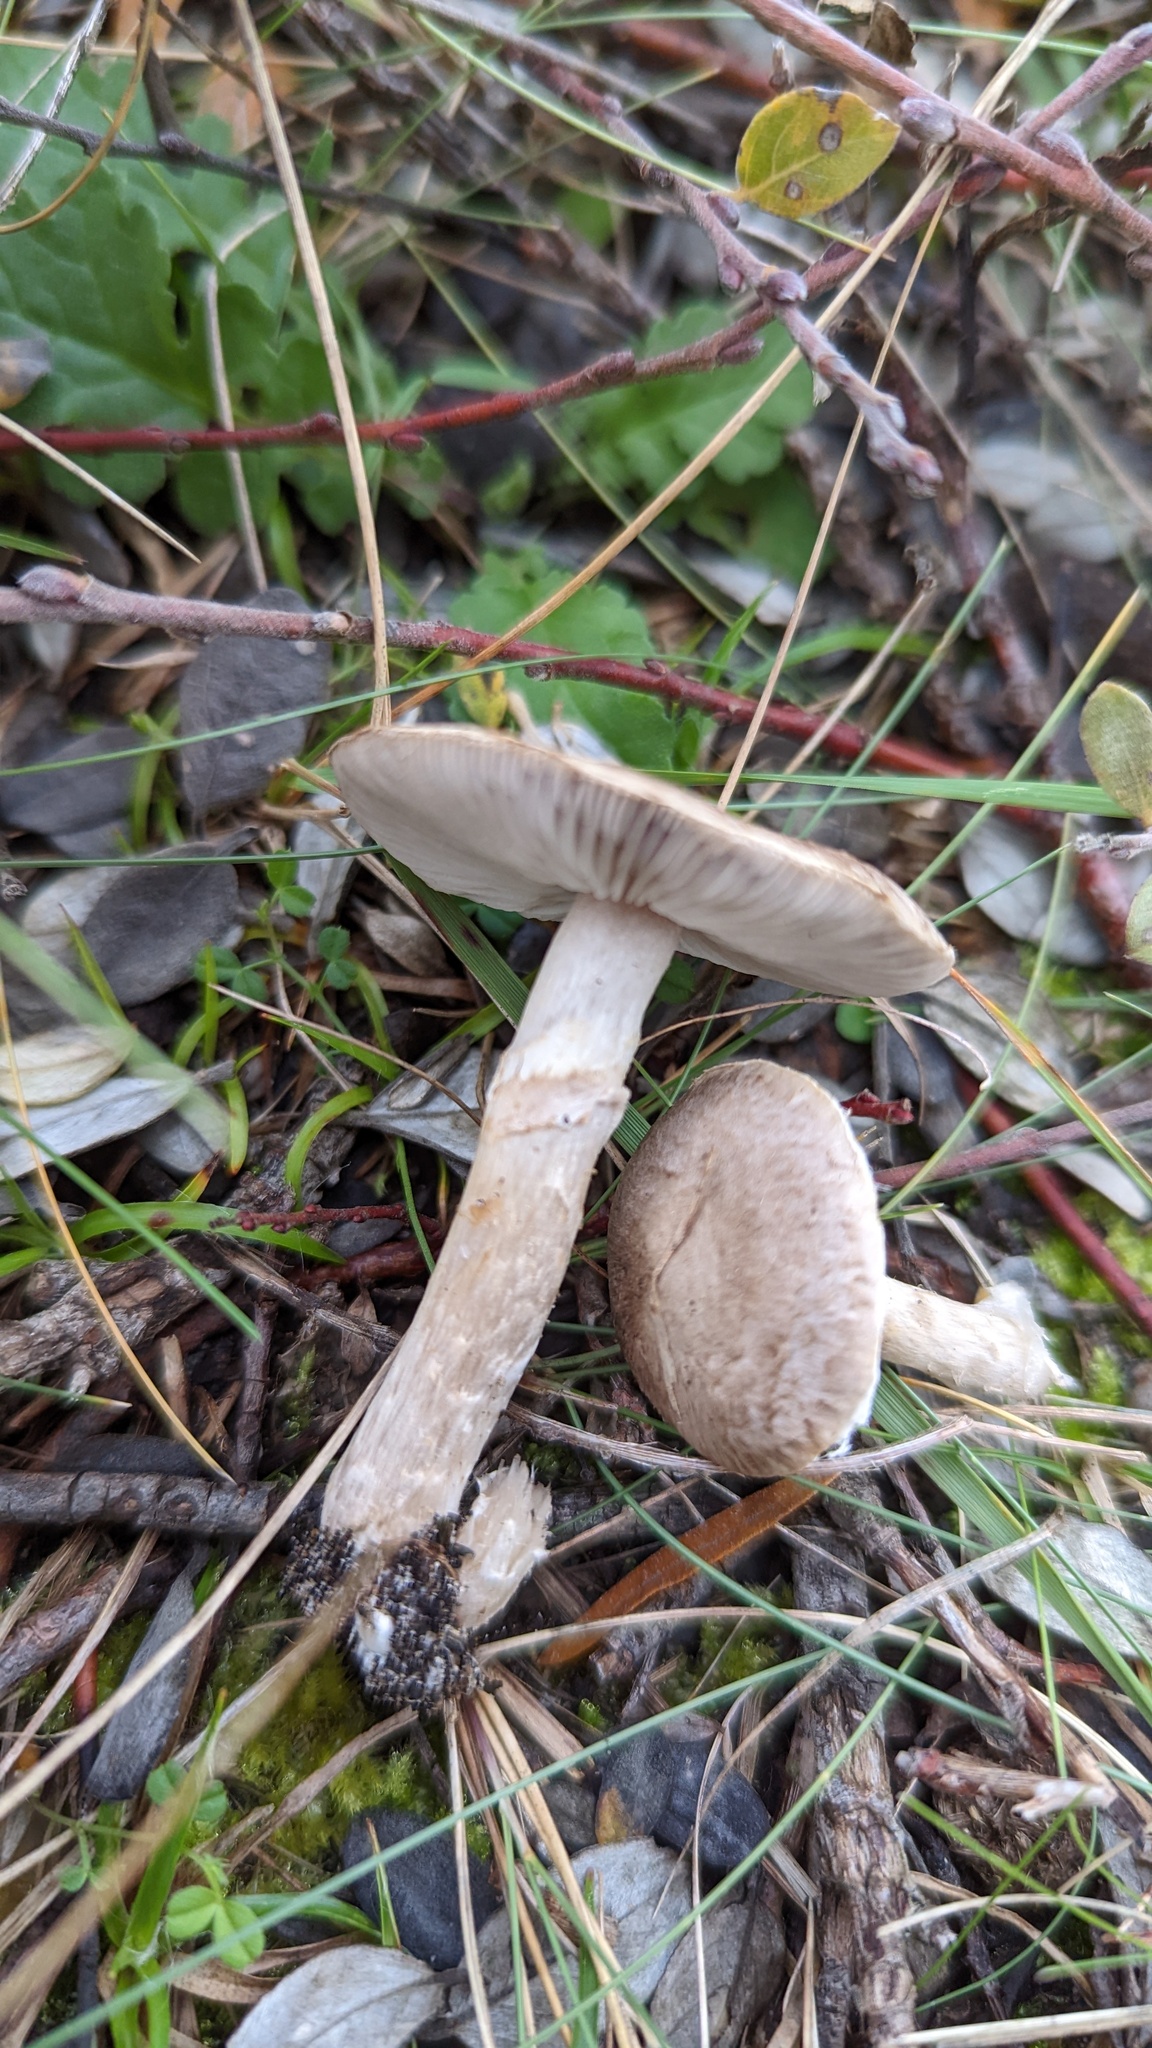
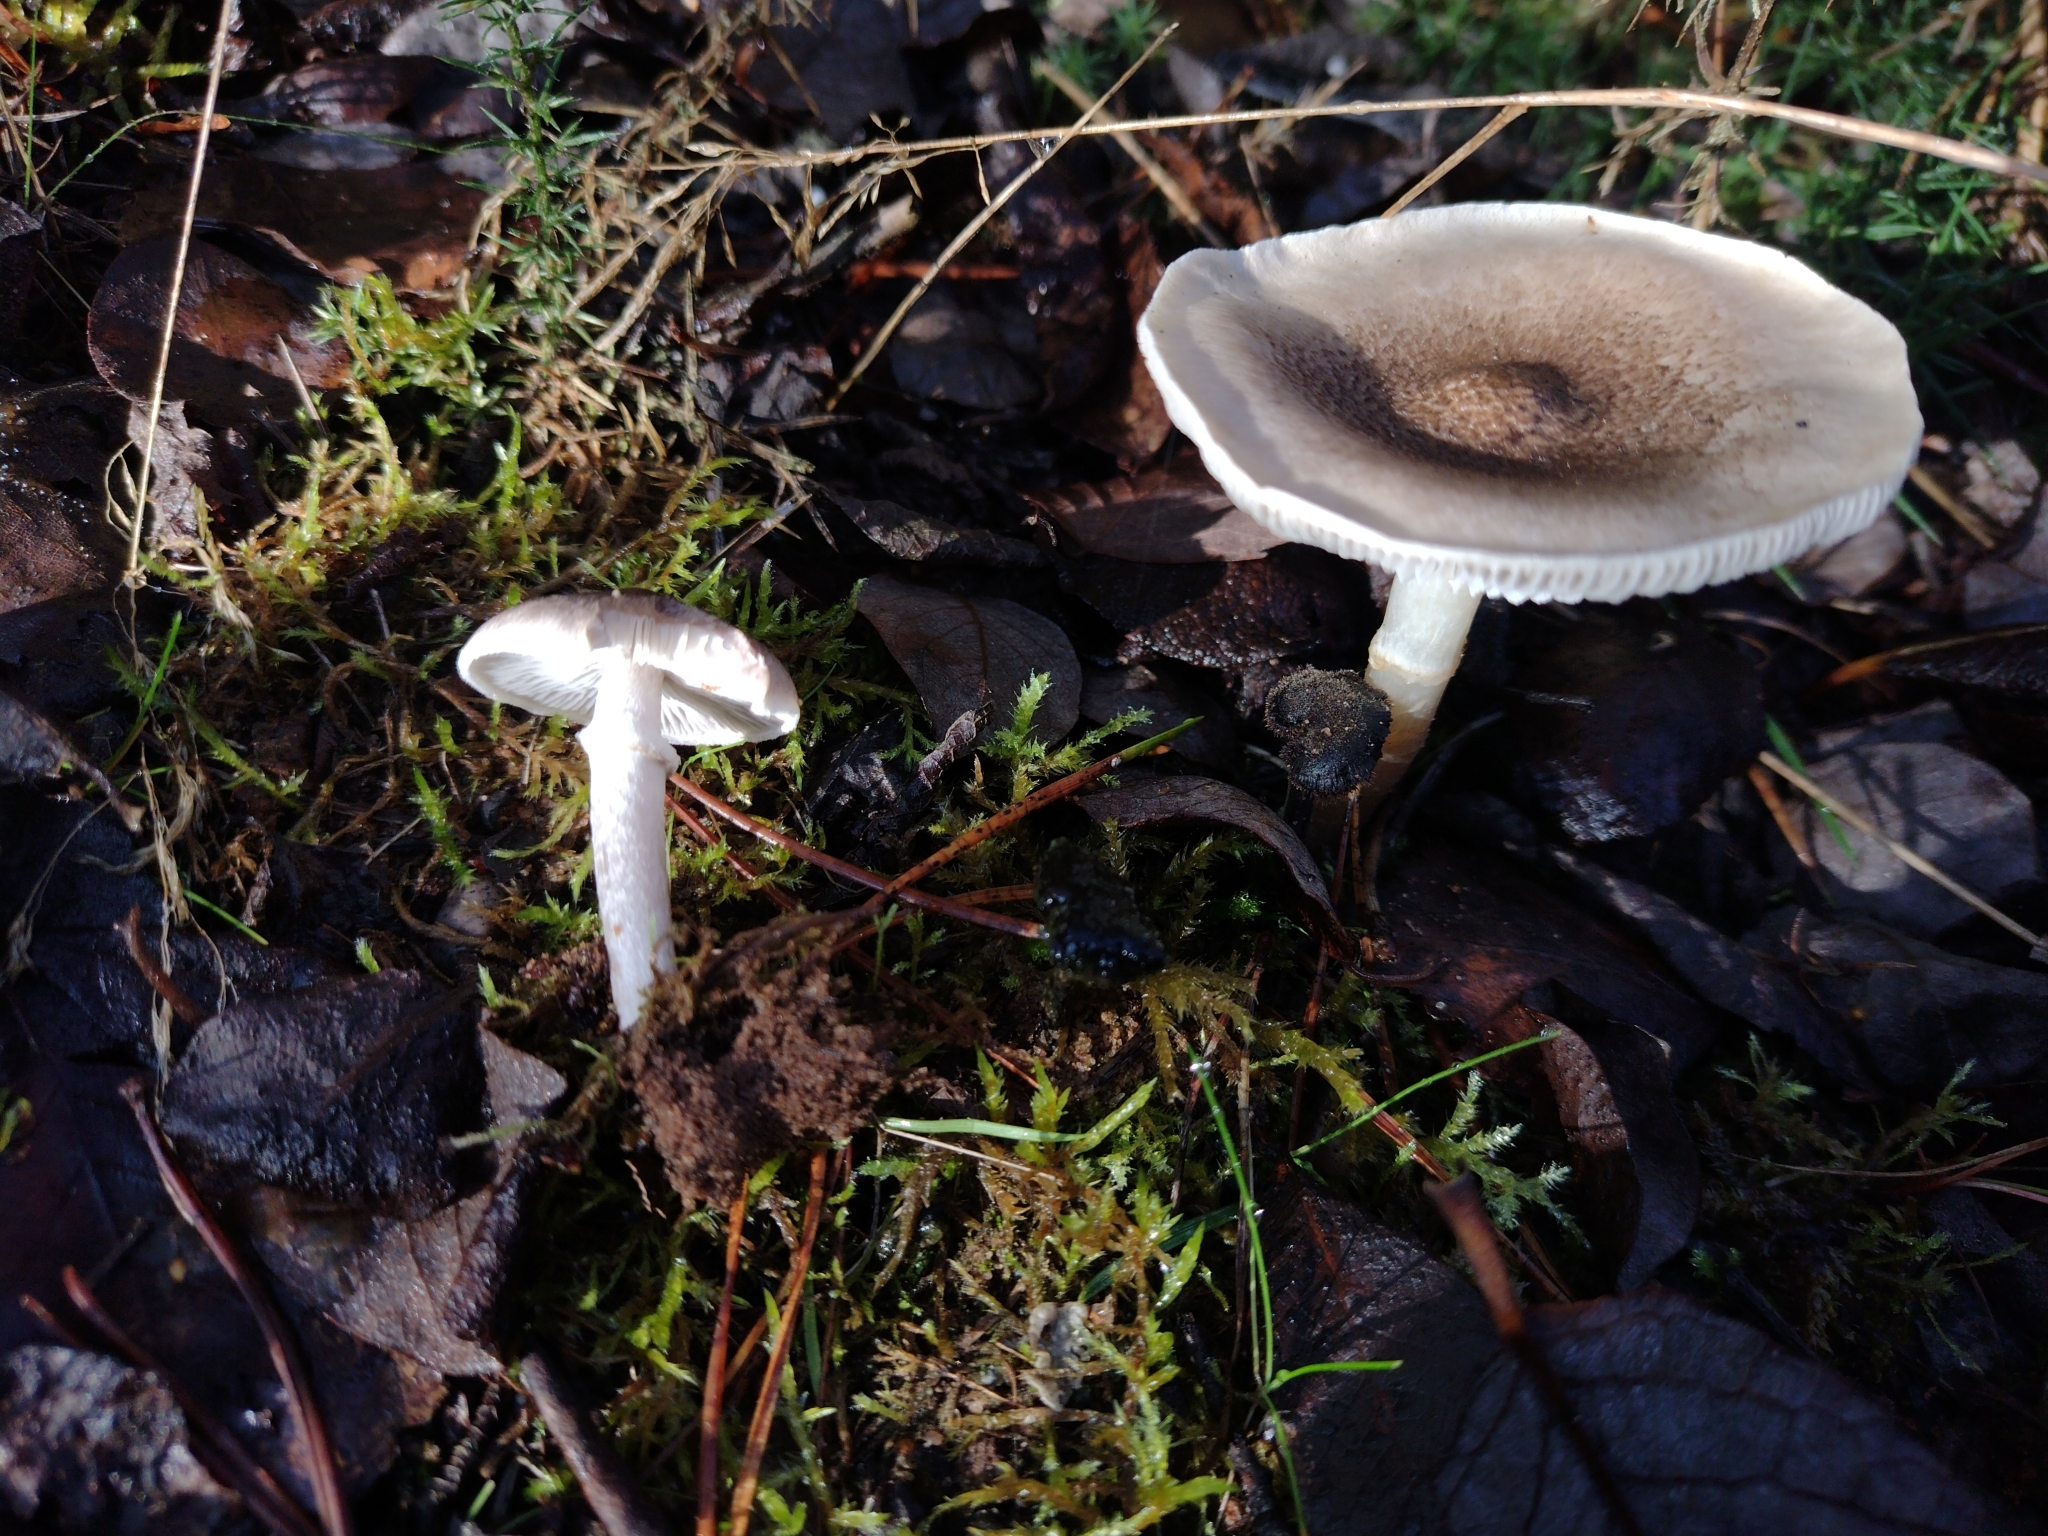
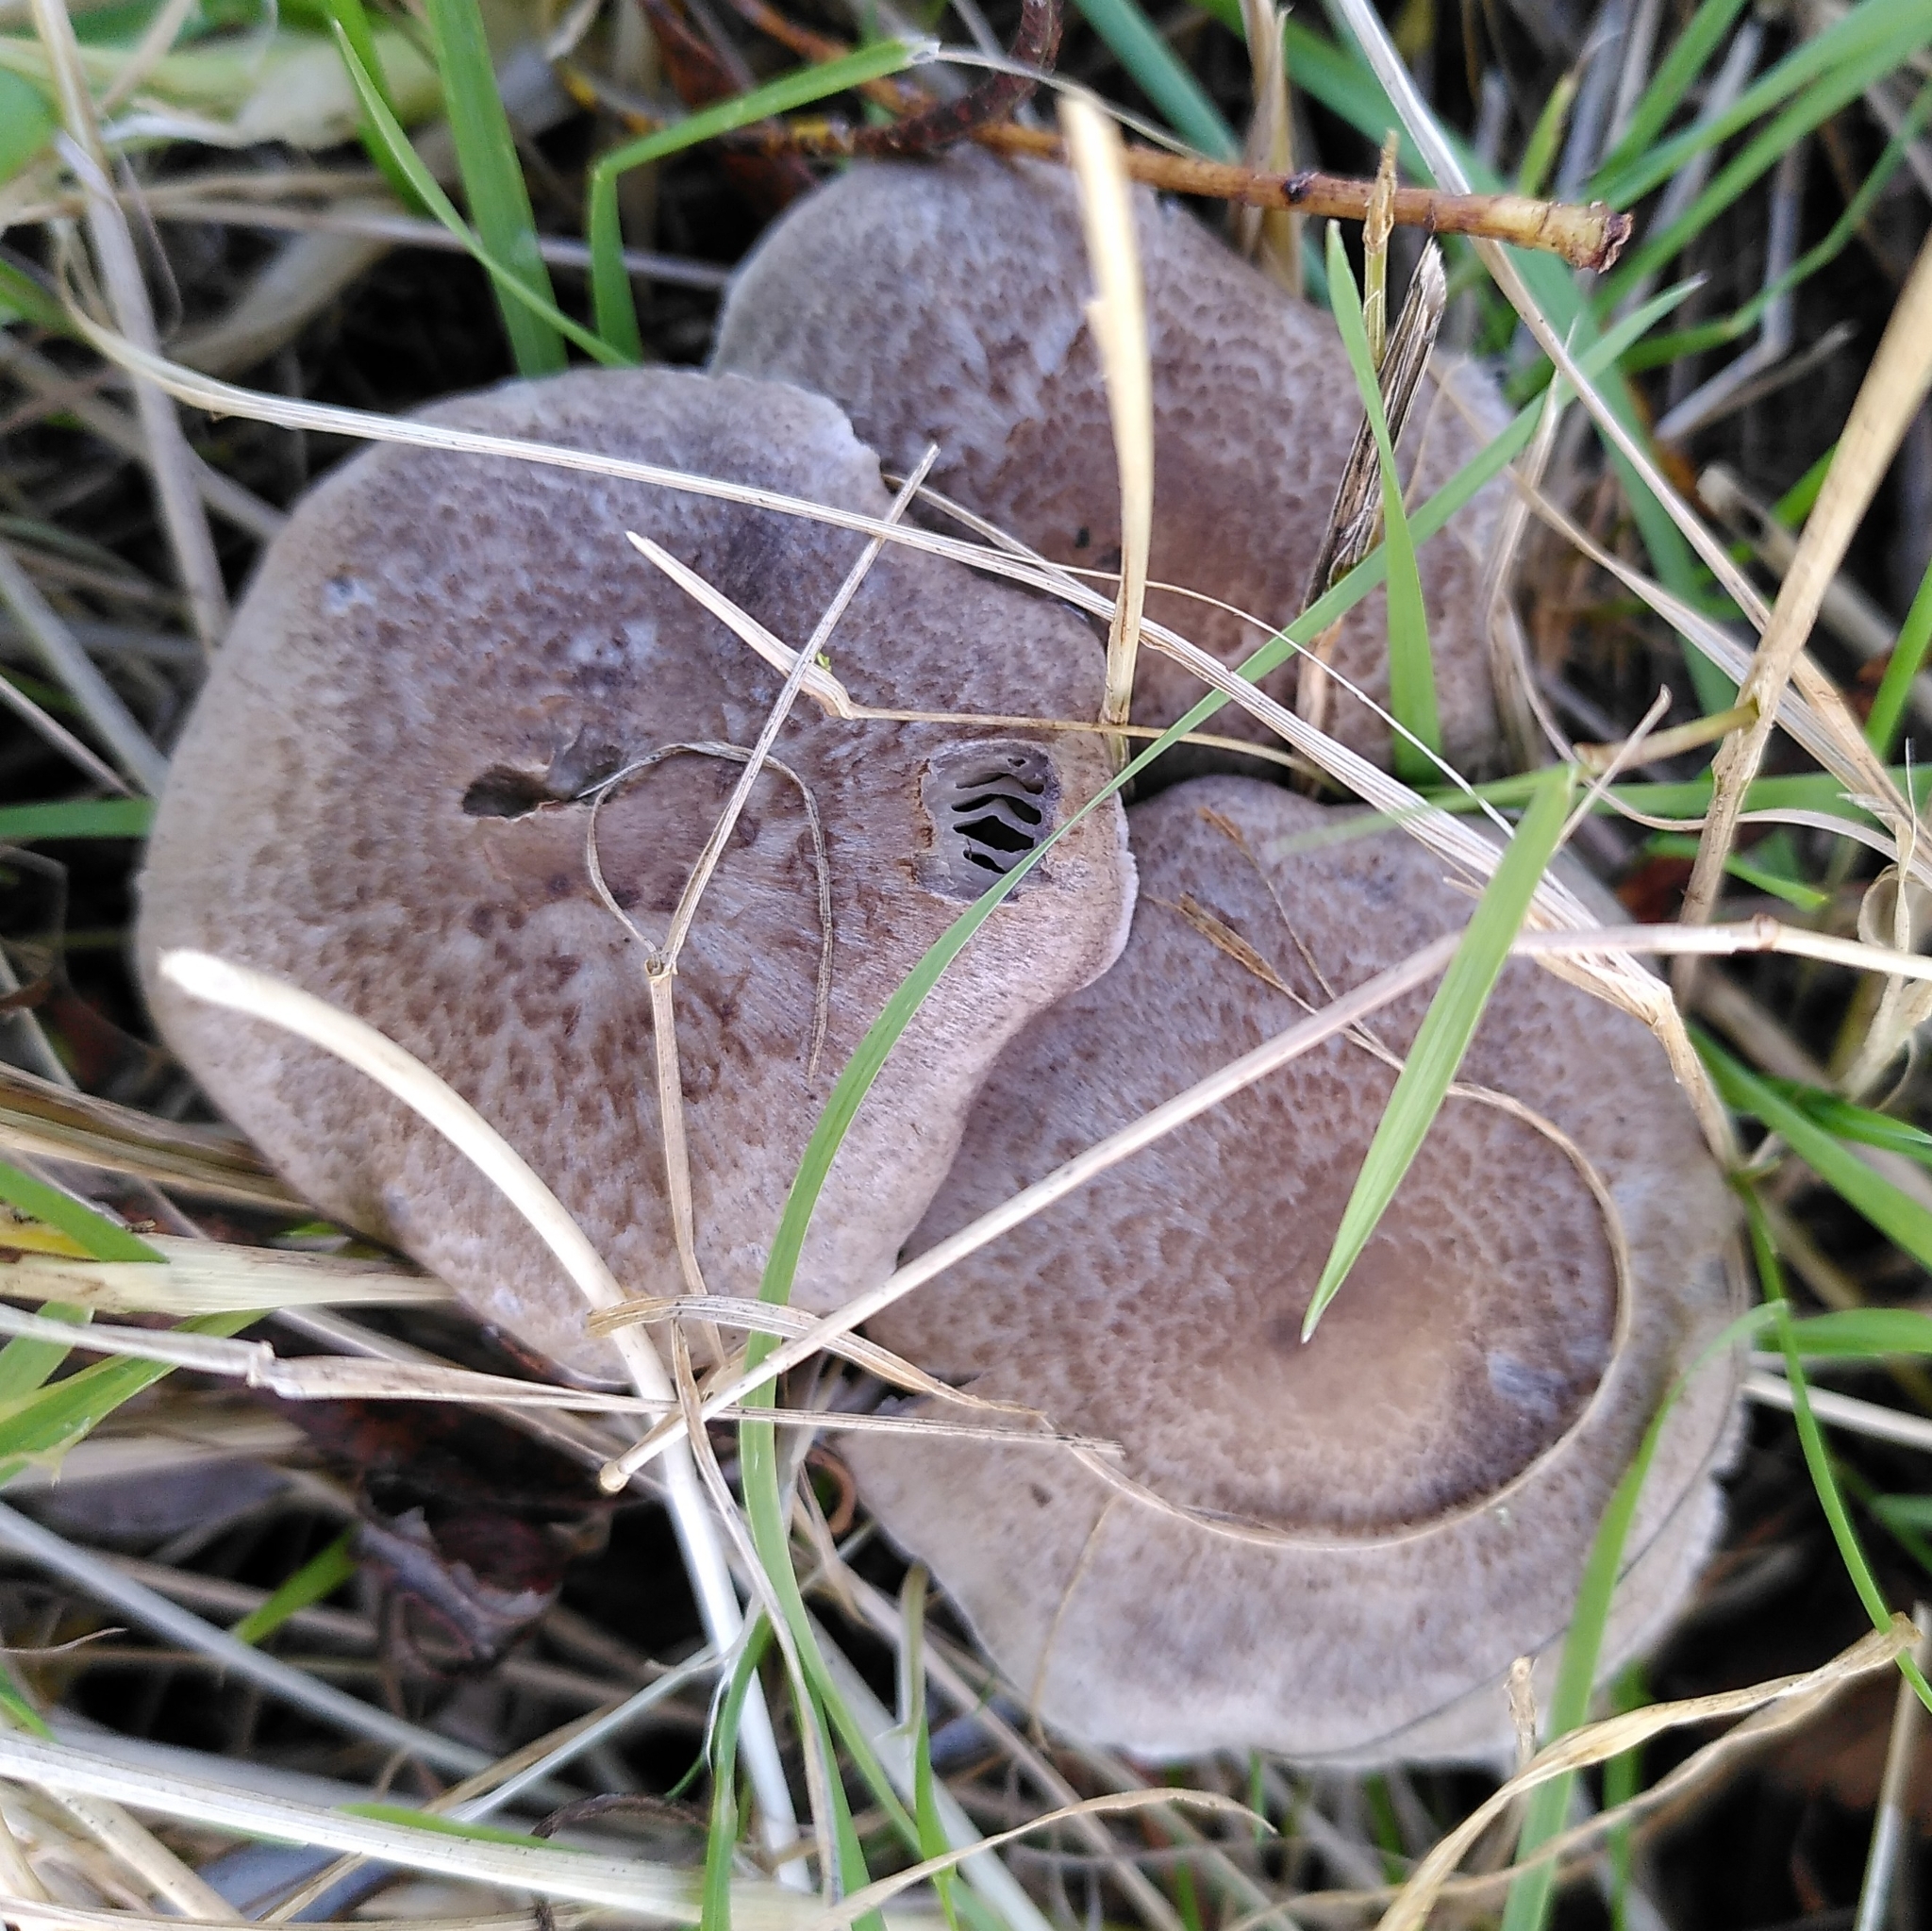
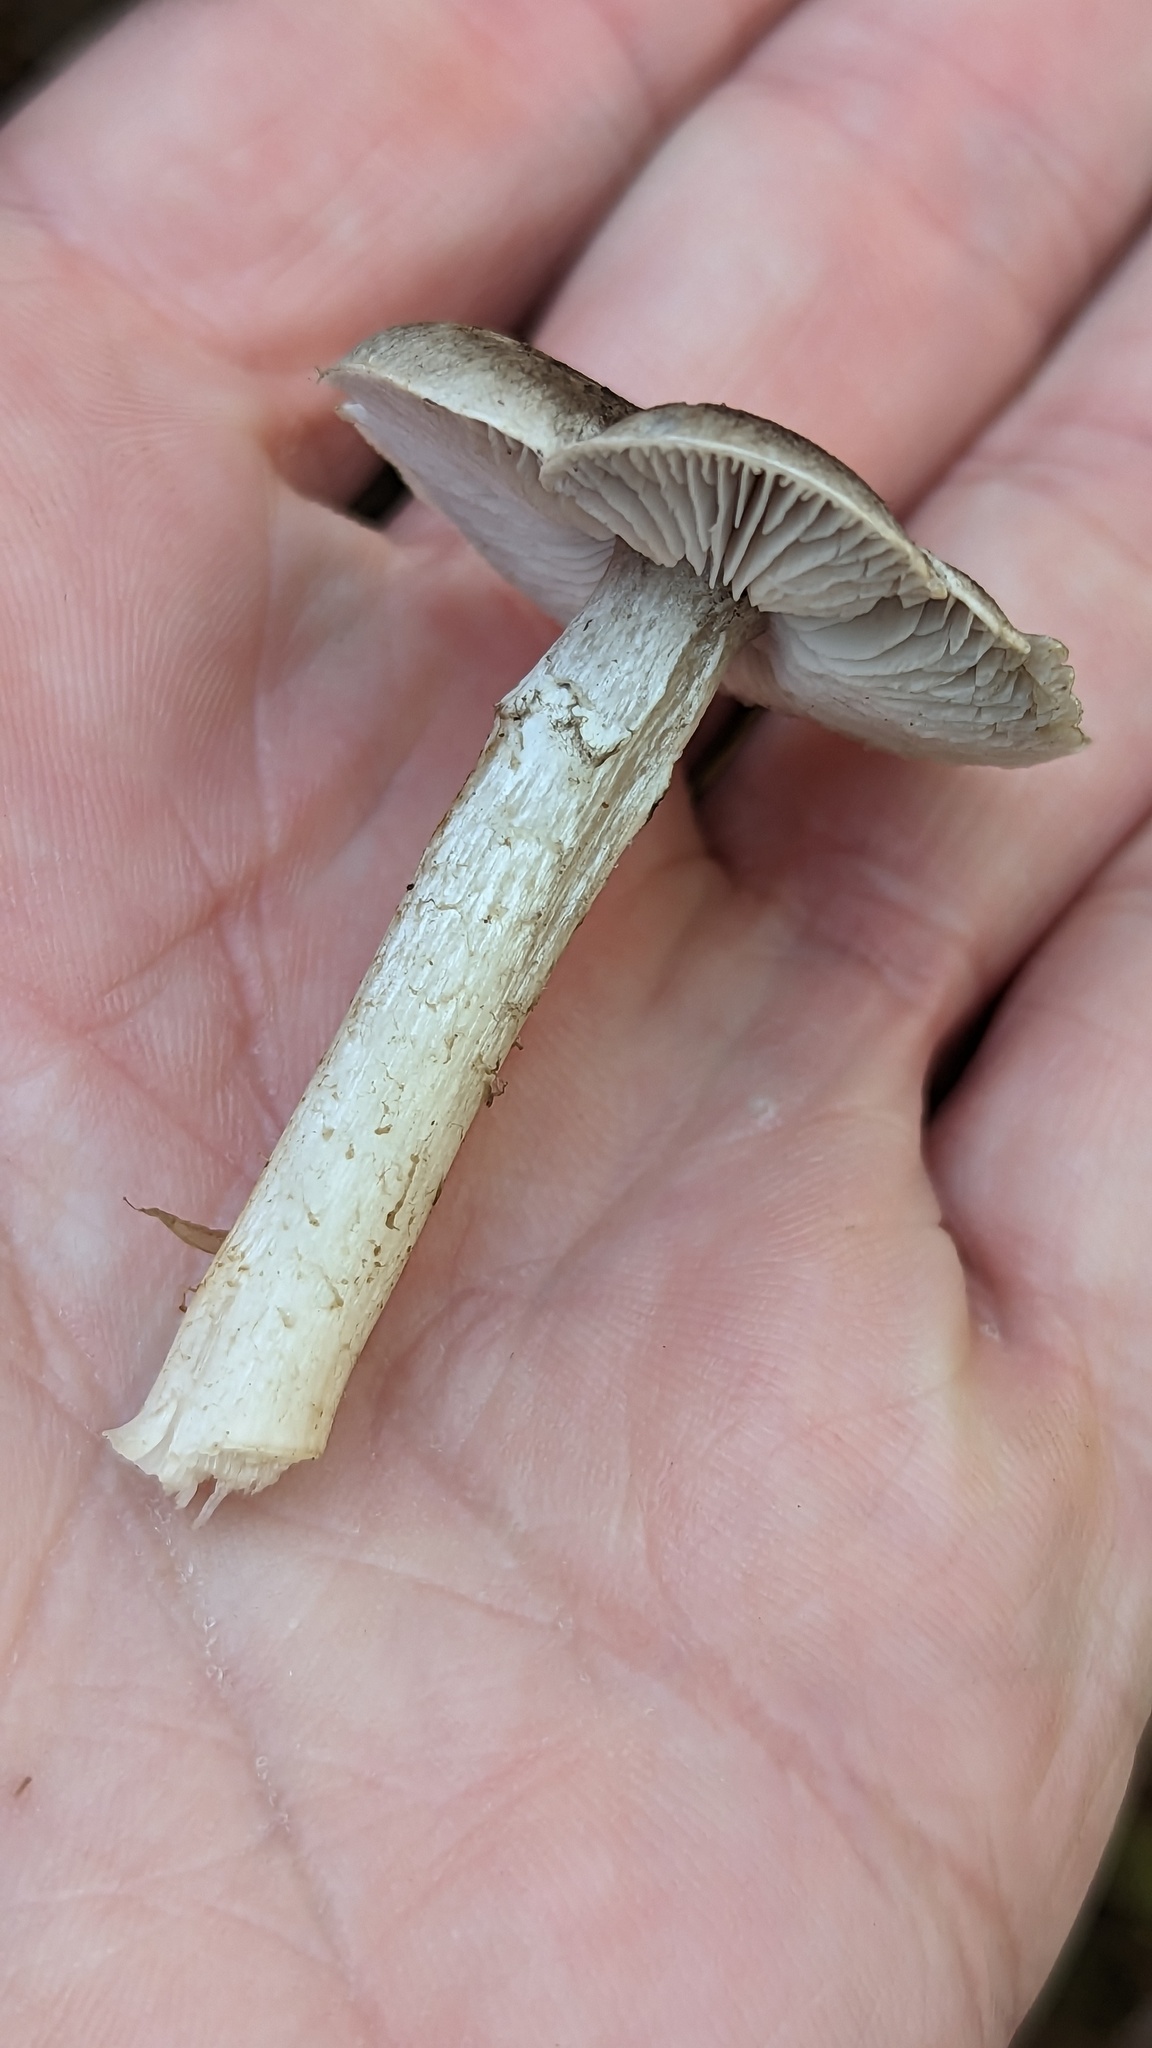
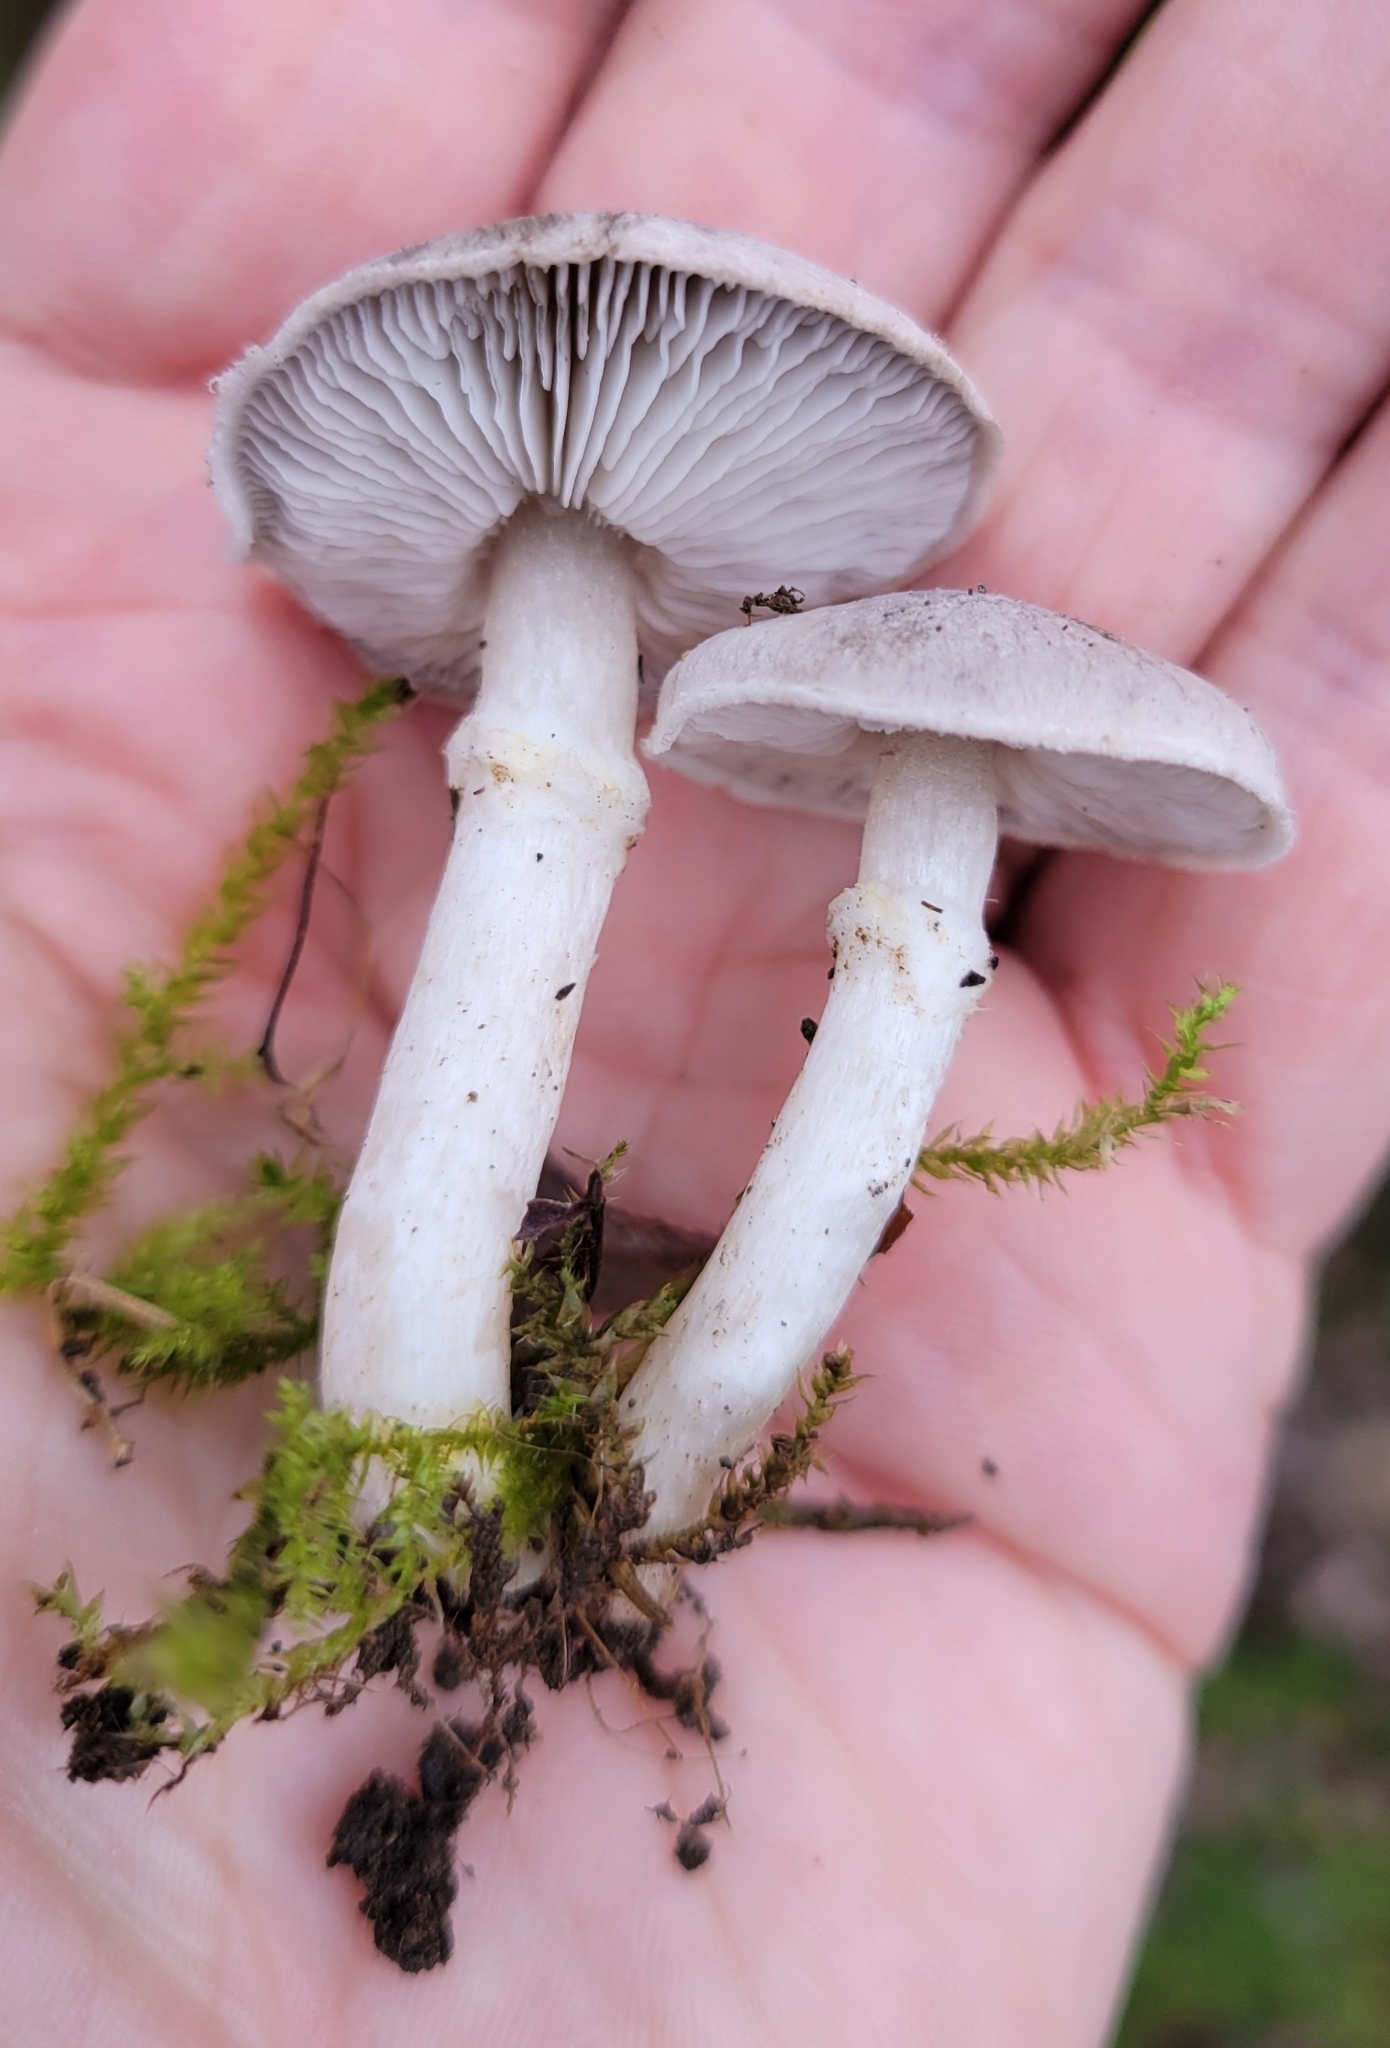
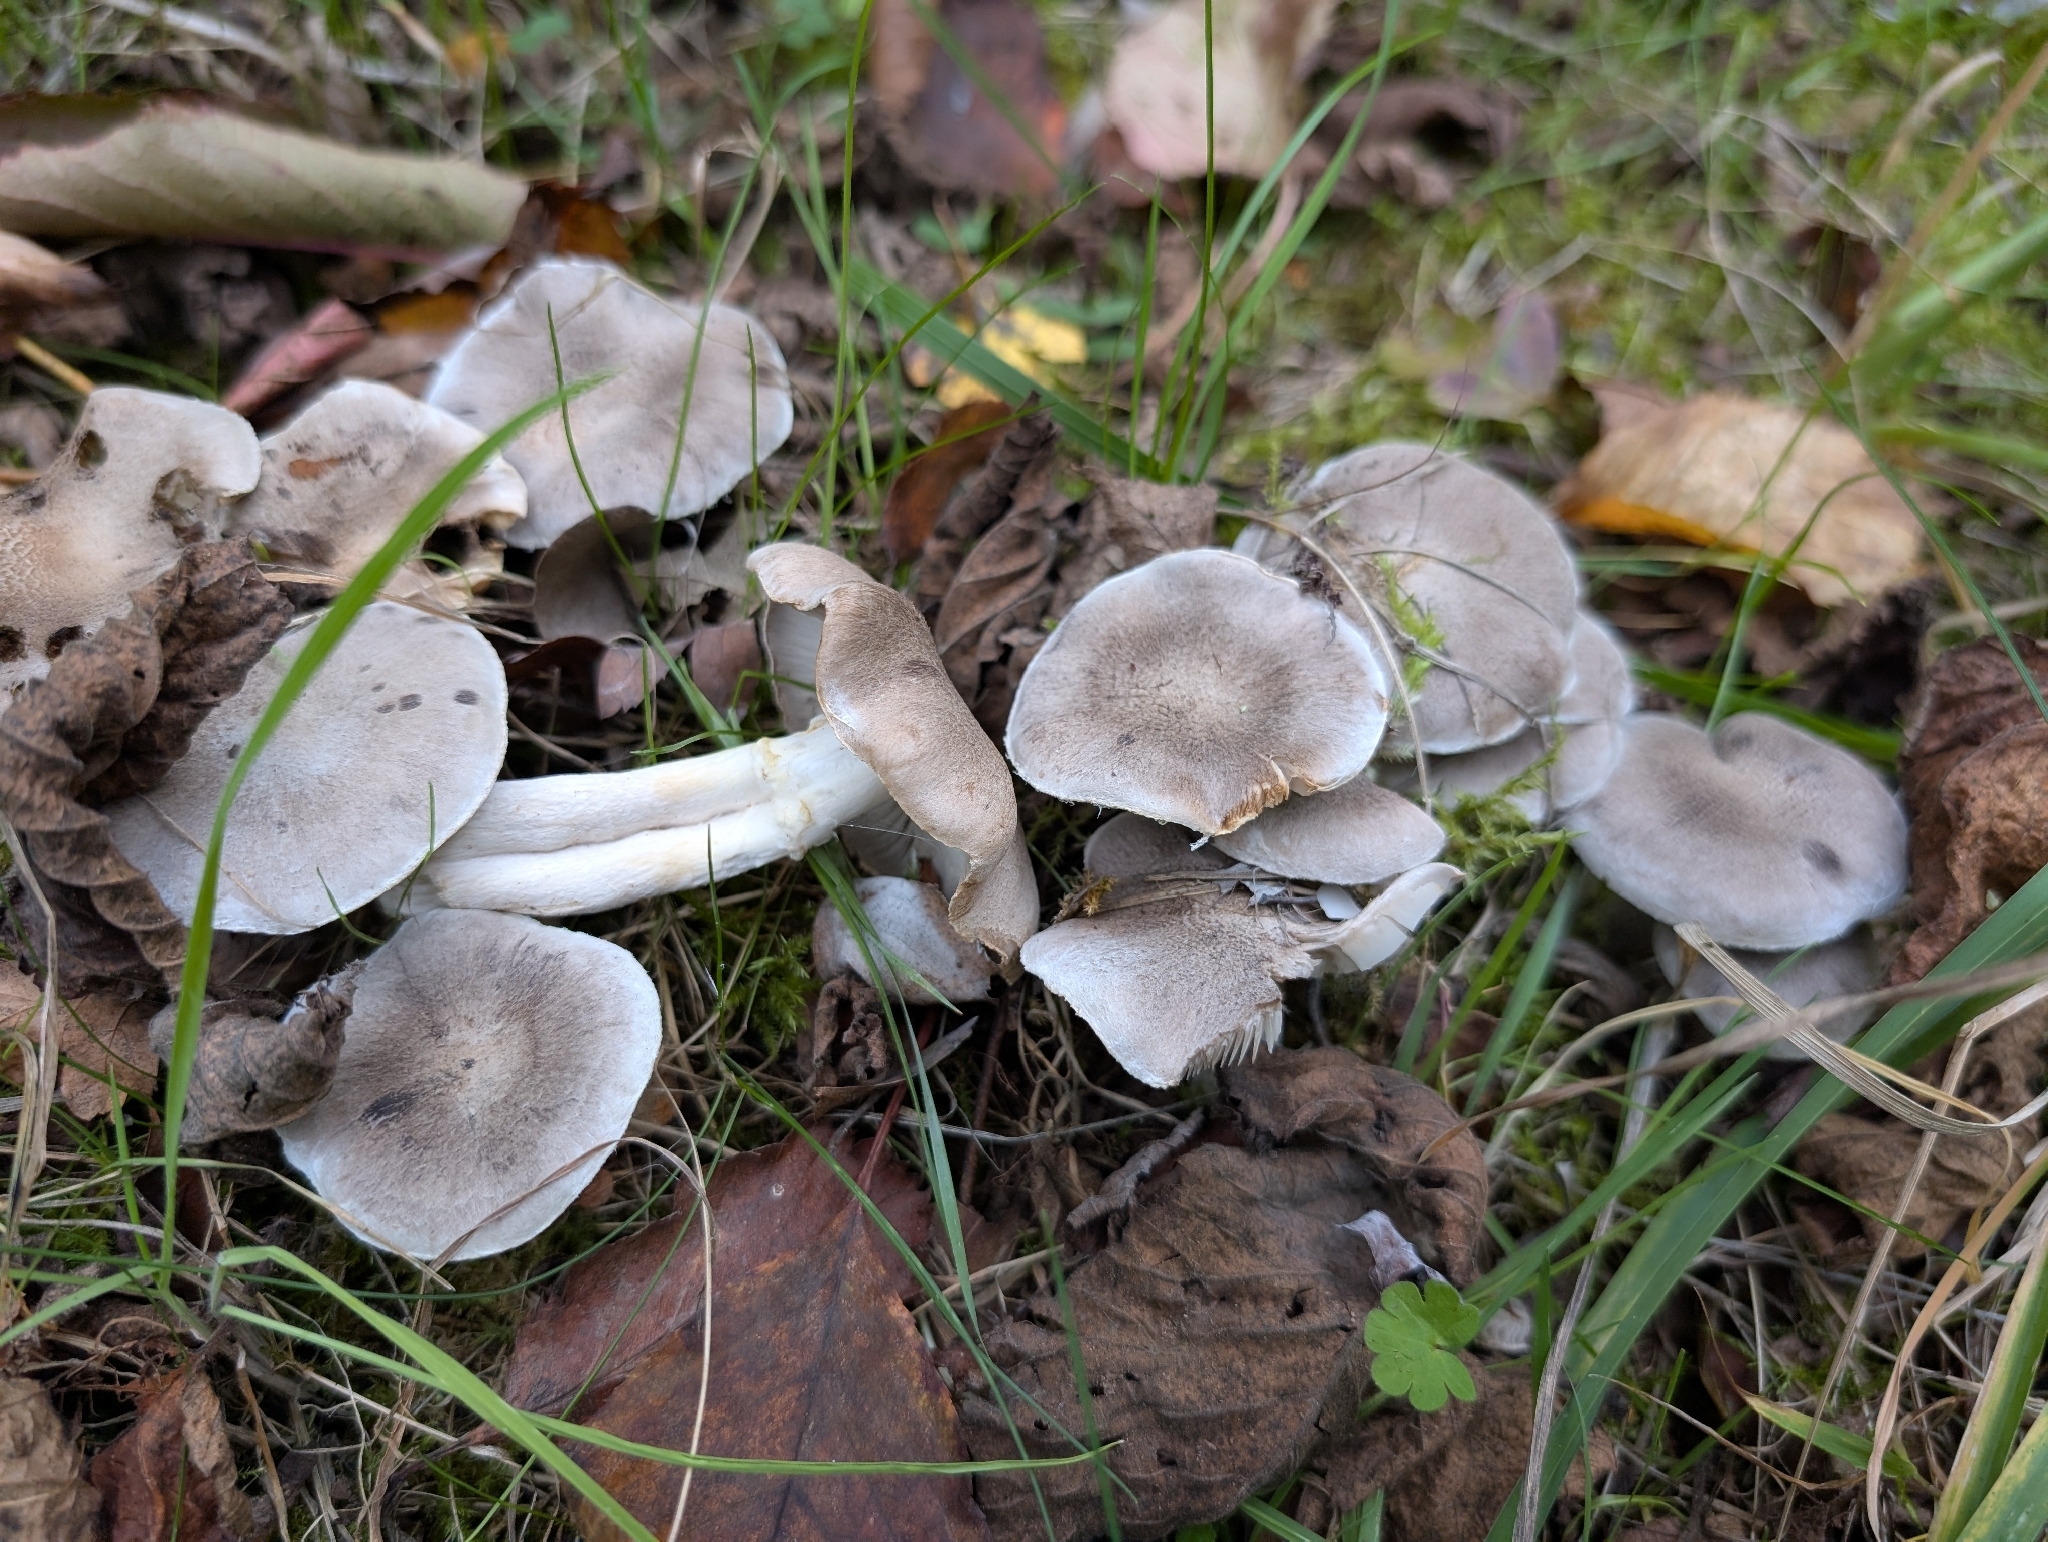


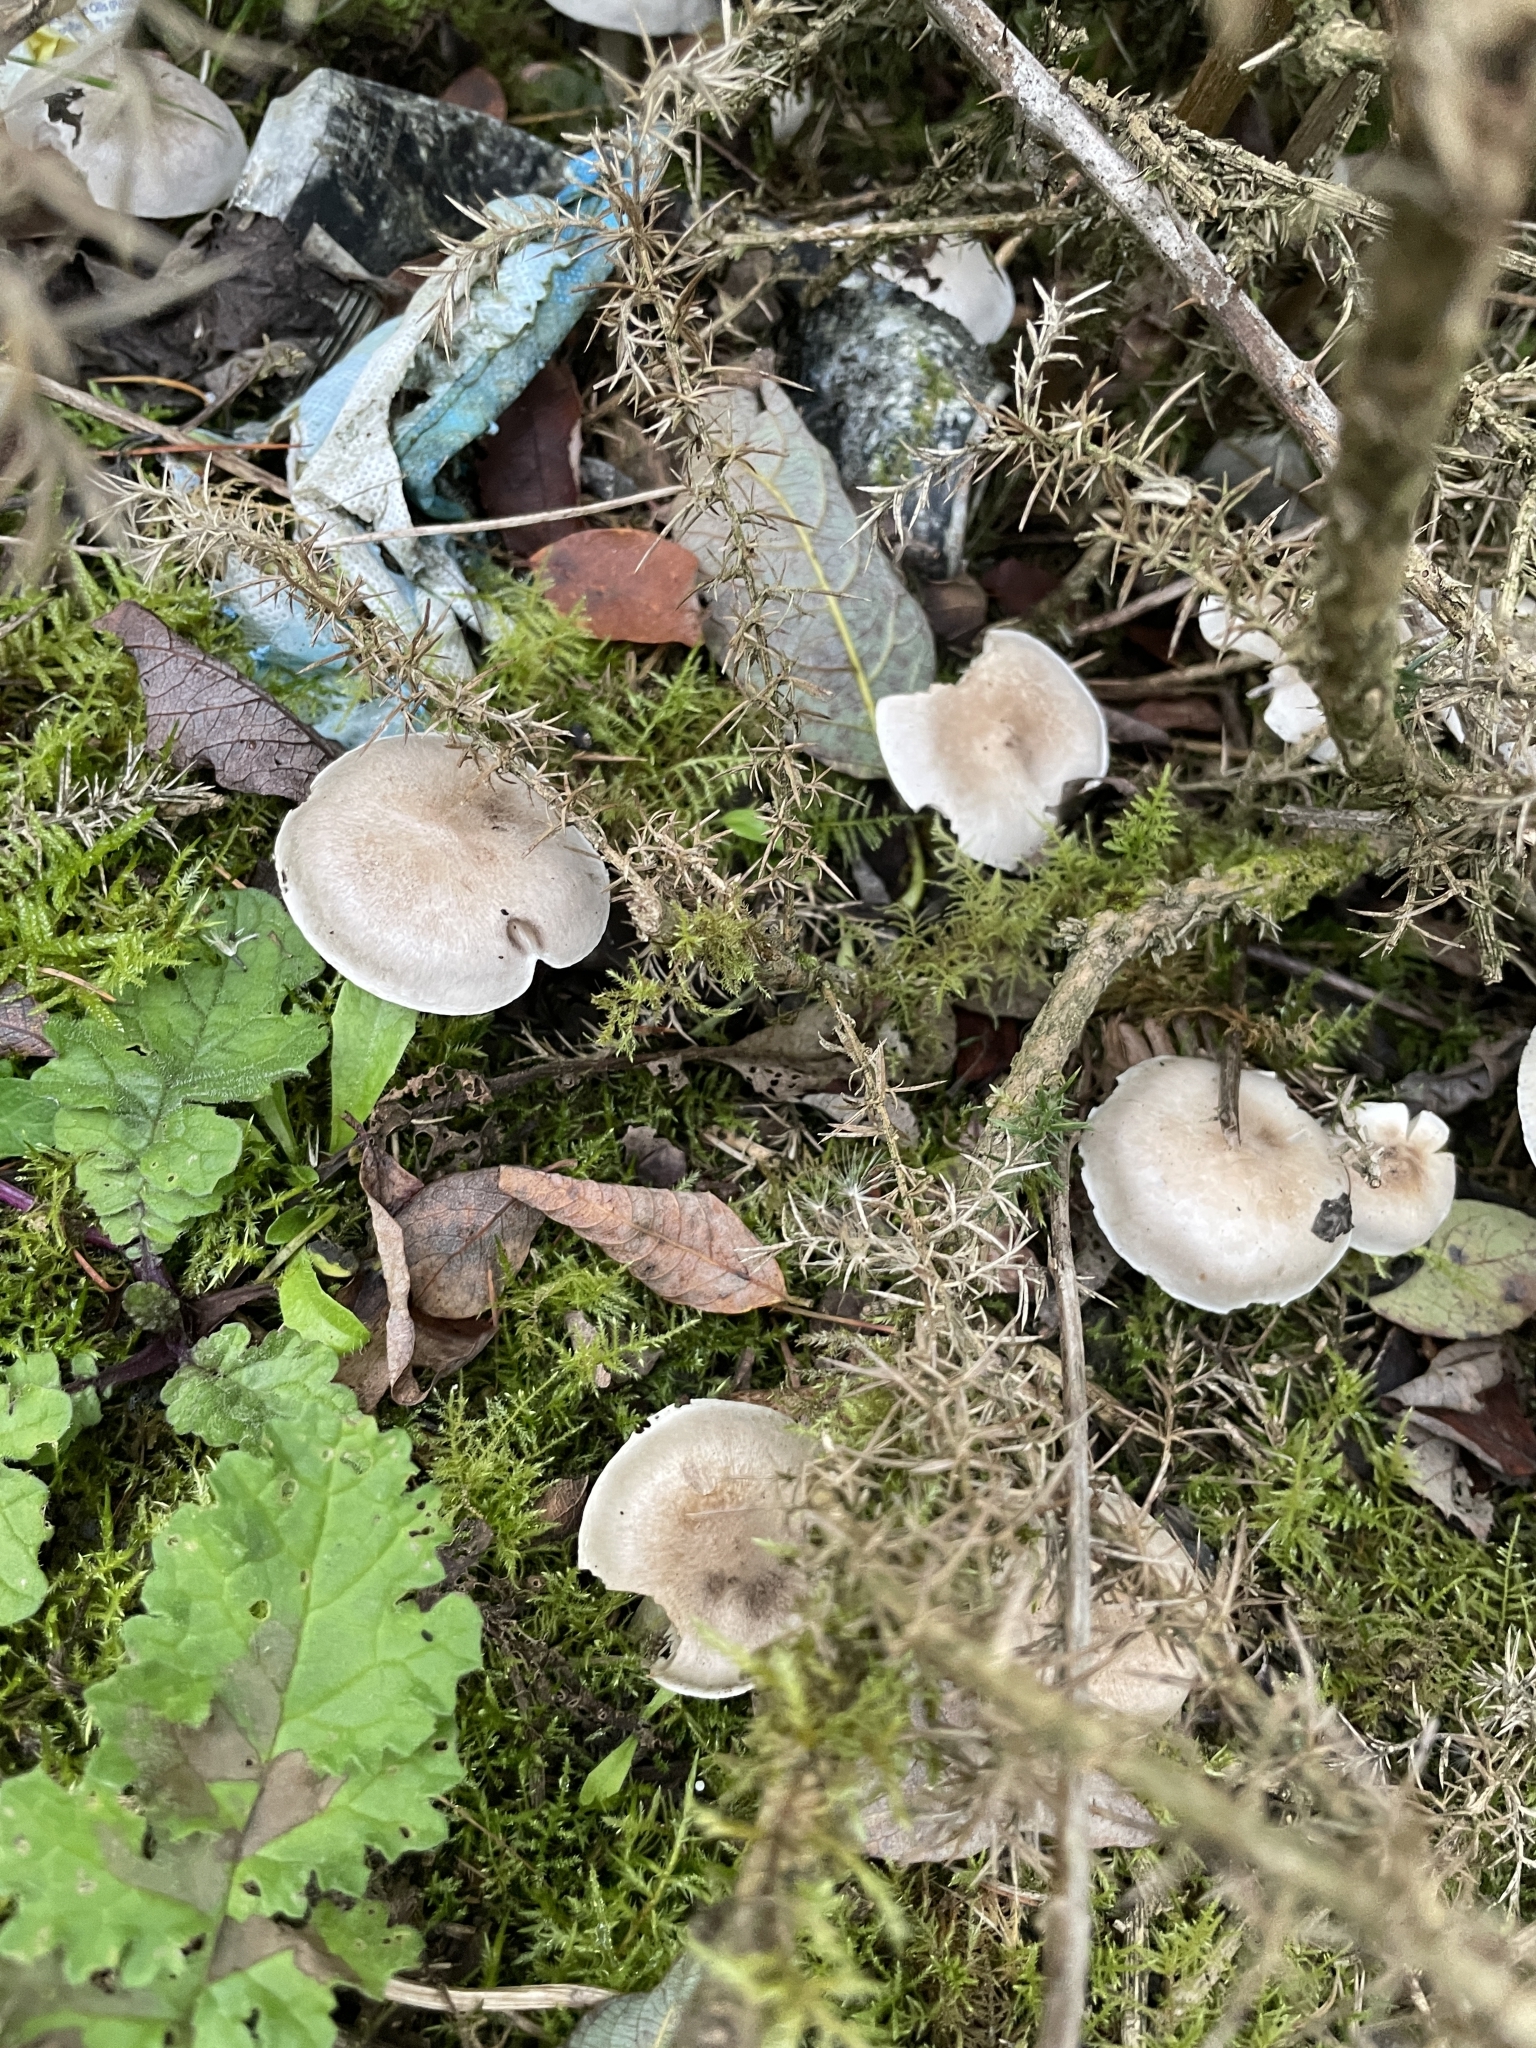
Рядовка опоясанная — редкий пластинчатый гриб из семейства рядовковых, легко узнаваемый по выраженному пленчатому кольцу на ножке. Шляпка диаметром от трех до семи сантиметров, выпуклая, затем распростертая, бледно-серая или серо-коричневая, с мелкими радиальными чешуйками. Мякоть тонкая, беловатая, с характерным отчетливым мучным запахом и вкусом. Образует облигатную микоризу исключительно с ивами на влажных почвах в сырых лесах и на речных поймах.
Определение, местообитание и важнейшие отличия.
Грибник
Строение плодового тела
- Тип строения плодового тела
- Тип строения плодового тела: Шляпка, ножка.
Шляпка
- Форма шляпки
- Форма шляпки: полушаровидный или колокольчатый.
Форма шляпки: плоский.
Форма шляпки: выпуклый.
Форма шляпки: выпуклый (уплощённый профиль). - Поверхность шляпки
- Поверхность шляпки: сухой.
- Покров шляпки
- Покров шляпки: войлочная.
Покров шляпки: чешуйчатая (мелкие чешуйки).
Покров шляпки: чешуйчатая (мелкие чешуйки, серо-коричневый покров).
Покров шляпки: чешуйчатая (мелкие чешуйки, оливковые).
Покров шляпки: чешуйчатая (коричневые).
Покров шляпки: чешуйчатая (серо-коричневый покров). - Блеск поверхности шляпки
- Блеск поверхности шляпки: матовый.
- Цвет шляпки
- Цвет шляпки: сероватый.
Цвет шляпки: белый.
Цвет шляпки: серый (светлый оттенок).
Цвет шляпки: серо-коричневый. - Положение края
- Положение края: завёрнутый внутрь.
у молодых плодовых тел: Положение края: загнутый внутрь. - Контур края шляпки
- Контур края шляпки: волнистый.
- Диаметр шляпки
- Диаметр шляпки составляет 30–60 mm.
- Центр шляпки
- Центр шляпки: с выраженным бугорком (тупой бугорок, иногда).
Центр шляпки: с выраженным бугорком. - Частное покрывало
- у молодых плодовых тел: Частное покрывало: присутствует (от края шляпки до ножки, беловатая, паутинистая).
Нижняя сторона шляпки
- Тип гименофора
- Тип гименофора: пластинки.
Пластинки у ножки
- Прикрепление гименофора к ножке
- Прикрепление гименофора к ножке: приросший к ножке (пластинки).
Прикрепление гименофора к ножке: свободный от ножки (пластинки). - Профиль гименофора у ножки
- Профиль гименофора у ножки: выемчатый у ножки (пластинки).
- Нисхождение гименофора по ножке
- Нисхождение гименофора по ножке: нисходящий зубцом (пластинки).
- Естественный цвет поверхности пластинки
- Естественный цвет поверхности пластинки: беловатая.
Естественный цвет поверхности пластинки: серый.
у зрелых плодовых тел: Естественный цвет поверхности пластинки: Желтоватый.
Естественный цвет поверхности пластинки: беловатая.
Естественный цвет поверхности пластинки: кремовый. - Расстояние между пластинками
- Расстояние между пластинками: умеренно густые.
Расстояние между пластинками: близко расположенные. - Высота пластинок
- Высота пластинок: 2–4 mm.
- Наличие коротких пластиночек
- Наличие коротких пластиночек: присутствует.
- Количество рядов длины пластиночек
- Количество рядов длины пластиночек: 2–3.
Ножка и основание
- Форма ножки
- Форма ножки: цилиндрический.
- Цвет ножки
- Цвет ножки: беловатая или серо-коричневый.
Цвет ножки: белый или беловатая.
Цвет ножки: белый. - Покров поверхности ножки
- Покров поверхности ножки: Войлочная и волокнистая.
в верхней части ножки: Покров поверхности ножки: хлопьевидная или чешуйчатая. - Внутреннее строение ножки
- Внутреннее строение ножки: сплошной.
- Длина ножки
- Длина ножки: 30–80 mm.
- Диаметр ножки
- Диаметр ножки: 5–15 mm.
Кольцо
- Наличие кольца
- Наличие кольца: присутствует.
Наличие кольца: присутствует.
Наличие кольца: присутствует. - Строение материала кольца
- Строение материала кольца: ватообразный.
Строение материала кольца: ватообразный.
Строение материала кольца: ватообразный. - Положение кольца
- Положение кольца: в верхней части ножки.
Положение кольца: в верхней части ножки. - Цвет кольца
- Цвет кольца: беловатая.
Цвет кольца: белый.
Мякоть
- Цвет мякоти
- Цвет мякоти: беловатая.
Цвет мякоти: белый или кремовый. - Плотность мякоти
- Плотность мякоти: плотный.
- Структура мякоти
- Структура мякоти: волокнистый (мякоть ножки).
- Запах мякоти
- Запах мякоти: мучнистый (всё плодовое тело).
Запах мякоти: приятный (мякоть). - Толщина мякоти шляпки
- Толщина мякоти шляпки: 2–3 mm.
- Вкусовые нотки
- Вкусовые нотки: мучнистый.
Где и когда растёт
- Местообитание
- Местообитание: лес без уточнения типа.
Местообитание: хвойный лес или смешанный лес.
Местообитание: лиственный лес, смешанный лес, пойменный лес, опушка леса, кустарниковые заросли, рудеральное или городское местообитание, луг или плодовый сад. - Субстрат
- Субстрат: почва.
- Характер роста плодовых тел
- Характер роста плодовых тел: группами.
Характер роста плодовых тел: одиночно или рассеянные группы.
Характер роста плодовых тел: группами, рассеянные группы или кругами. - Частота встречаемости
- Период плодоношения
- Плодовые тела появляются с октября по декабрь (наблюдавшийся период, годы наблюдений: 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023, месяцы наблюдений: 10, 11, 12).
- Ареал распространения
- Potwierdzono występowanie w Polsce.
Съедобность и кулинария
- Съедобность
- Съедобный
- Требуемая кулинарная обработка
- Требует кулинарной обработки
Законодательство
- Охрана
- Вид не включён в польский перечень охраняемых видов грибов.
- Торговля
- Вид не включён в польский перечень грибов, допущенных к обороту.
FAQ
С какими деревьями образует связь рядовка опоясанная?
Она образует облигатную микоризу исключительно с различными видами ив на влажных почвах.
В каких местах растет рядовка опоясанная?
Она встречается в сырых поймах рек, на заболоченных опушках, берегах канав и во влажных ивняках.
Когда можно встретить этот гриб в природе?
Основной период плодоношения продолжается с конца августа до конца октября или ноября.
Какая главная внешняя примета вида?
Наличие четкого волокнистого или пленчатого кольца-пояска в верхней части ножки.
Какой запах характерен для мякоти гриба?
Мякоть имеет отчетливый, свежий мучной запах и вкус.
Считается ли рядовка опоясанная съедобной?
Да, в атласах она приводится как съедобная, хоть и среднего качества. В новых работах есть разные мнения насчет группы T. terreum, но токсичность рядовки опоясанной не доказана.
Как правильно подготовить этот гриб к употреблению?
Его обязательно отваривают не менее 20 минут в подсоленной воде, после чего отвар сливают.
Кто научно описал этот вид в XIX веке?
В 1830 году вид описали Альмфельт и Элиас Фрис (как Agaricus cingulatus), а комбинацию Tricholoma cingulatum позже обнародовал Эрнст Якобаш.
Что означает видовой эпитет cingulatum?
Эпитет происходит от латинского слова cingulum, означающего «пояс» или «колечко».
Применяется ли этот гриб в натуральном окрашивании?
Да, энтузиасты крашения окрашивают им протравленную шерсть в серебристо-серые и палевые тона.
Любитель
Названия и история
- Действующее национальное название
- Gąska wierzbowa
- Действующее таксономическое название
- Tricholoma cingulatum
- Остальные названия
- gąska obuta
Наблюдения дома
Споровый порошок
- Необходимые материалы
- свежая, зрелая шляпка, лист бумаги, стакан или чашка, вода
- Время
- 2–24 h
- Выполнение
- Положите шляпку нижней стороной на бумагу.
- Нанесите каплю воды на верхнюю сторону и накройте.
- Через 2–24 часов поднимите шляпку и осмотрите осадок.
Что искать
- Цвет спорового отпечатка
- Цвет спорового отпечатка: белый.
Под микроскопом
- Необходимые материалы
- световой микроскоп, предметное и покровное стёкла, игла, вода, споры из спорового порошка
- Выполнение
- Перенесите иглой немного спорового порошка на стекло.
- Добавьте каплю воды, накройте покровным стеклом и рассмотрите споры.
Что искать
- Форма споры
- Форма споры: эллипсоидный. Форма споры: цилиндрический. Форма споры: эллипсоидный (широкий). Форма споры: эллипсоидный. Форма споры: эллипсоидный (удлинённый).
- Поверхность споры
- Поверхность споры: гладкий. Поверхность споры: гладкий.
- Размеры споры
- Длина 4–7,2 µm, ширина 2,5–4,2 µm.
- Размеры споры
- Длина 5,2 µm, ширина 3,1 µm.
Сравнивайте размеры после калибровки шкалы микроскопа.
Экология и распространение
- Микоризные партнёры
- Общая связь вида: Микоризные партнёры: Salix repens (общий перечень партнёров).
- Способ питания
- Способ питания: эктомикоризный.
Некулинарное применение
Некулинарное применение рядовки опоясанной носит сугубо нишевый характер, так как вид никогда не находил коммерческого, промышленного или медицинского применения.
Основная задокументированная сфера использования вида — научно-образовательная и гербарная практика. Образцы Tricholoma cingulatum служат эталонными материалами в микологических фондах университетов и ботанических институтов. Благодаря стойкому пленчатому покрывалу плодовые тела вида используются на практических занятиях по ботанике споровых растений для демонстрации типов покрывал и морфогенеза пластинчатых грибов.
В области ремесленного натурального крашения текстиля плодовые тела рядовки опоясанной применяются мастерами-энтузиастами для извлечения пигментов. При кипячении с предварительно протравленной алюмокалиевыми квасцами овечьей шерстью экстракт дает мягкие серебристо-серые и палево-пепельные оттенки, устойчивые к выгоранию на солнечном свете.
Также вид используется как наглядный биоиндикатор влажных пойменных почв и естественного возобновления ивовых зарослей при проведении полевых природоохранных инвентаризаций.
История и культура
Рядовка опоясанная не оставила яркого следа в народном фольклоре и мифологии, что объясняется ее локальным произрастанием и невысокой популярностью у населения. Ее культурное значение связано прежде всего с историей европейской микологии девятнадцатого века. Вид был научно описан в 1830 году под названием Agaricus cingulatus (Almfelt ex Fr.), а позднее переведен в род Tricholoma немецким микологом Эрнстом Якобашем.
Видовой эпитет «cingulatum» происходит от латинского слова cingulum («пояс», «кольцо»), что подчеркивает главную морфологическую особенность гриба — наличие хорошо заметного волокнистого пояска или кольца на ножке, крайне нетипичного для большинства представителей рода Tricholoma. В ботанических атласах конца девятнадцатого и начала двадцатого веков этот вид иллюстрировался как классический пример редкой эволюционной формы сохранения частного покрывала среди трихоломовых. В немецкой и польской микологической литературе вид получил образные народные имена («Geringelter Ritterling», «Gąska opasana»), подчеркивающие поясное строение ножки.
Съедобность и безопасность
В микологических атласах рядовка опоясанная классифицируется как съедобный гриб посредственного качества. Ее тонкая мякоть обладает выраженным мучным запахом и вкусом, который не всем приходится по душе, а небольшие размеры плодовых тел делают заготовки малопродуктивными.
Что касается безопасности, в ряде современных публикаций высказываются предостережения относительно употребления грибов из группы рядовки землистой (Tricholoma terreum). Микологи подчеркивают, что это лишь различные исследовательские оценки, которые не доказывают токсичность самой рядовки опоясанной. Представления о ее безусловной опасности в сыром виде или требование обязательного вываривания с удалением отвара научно не обоснованы, хотя стандартная кулинарная термическая обработка остается обычной практикой.
Основной риск при сборе связан с возможной путаницей с ядовитыми волоконницами и серыми рядовками. Грибникам следует ориентироваться на отчетливое войлочное кольцо на ножке и произрастание исключительно рядом с ивами. В европейских странах этот гриб собирают редко, в основном опытные грибники-любители.
Местообитание и встречаемость
Рядовка опоясанная приурочена к умеренному климатическому поясу Евразии и Северной Америки. Встречается в странах Центральной, Северной и Восточной Европы, а также в отдельных регионах Сибири. Вид обладает строгой экологической специализацией: он является облигатным микоризообразователем с различными видами ив (Salix), включая иву козью, иву пепельную, иву белую и карликовые формы.
Основными местообитаниями служат сырые пойменные заросли, заболоченные опушки, влажные луга с кустарниковыми ивами, берега канав, прудов, рек и водохранилищ, а также сырые смешанные леса и торфяные окраины. Изредка гриб отмечается во вторичных биотопах — заброшенных песчаных и гравийных карьерах, где пионерные ивы образуют первые сомкнутые заросли.
Сезон плодоношения начинается в конце лета и приходится преимущественно на осень. Первые плодовые тела формируются в конце августа, а пик плодоношения наступает в сентябре и продолжается до конца октября или первых устойчивых заморозков в ноябре. В более южных европейских областях с теплой осенью гриб можно обнаружить вплоть до начала декабря, если почва сохраняет влажность.
Источники
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Исследователь
Съедобность и кулинария
Данные источников: съедобность, употребление и использование
- Съедобность
- Съедобный — источник определения
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Кулинарное использование: В атласах обычно обозначается как съедобная; текущая групповая оговорка сохранена в Исследователе.
- Требуемая кулинарная обработка
- Требует кулинарной обработки
FAQ gatunku: obróbka termiczna · literal_statements/0 и/1: требование термической обработки в FAQ. Это запись редакционного содержания, не результат токсикологического эксперимента.
Научные названия и таксономия
- Действующее научное название
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[29] [32]
Экология и распространение
- Частота встречаемости
- Нидерланды: Частота встречаемости: обычный. [17]
Лабораторная диагностика
Структурированные данные
Базидии
Гимениальные цистиды
Остальные лабораторные признаки
- Длина
- Длина: 35–150 µm. [8]
- Толщина стенки
- Толщина стенки: 1 µm (приблизительное значение). [8]
Толщина стенки: 0,5–1 µm (приблизительное значение). [8] - Толщина стенки — качественная оценка
- Толщина стенки — качественная оценка: тонкостенный. [33]
Толщина стенки — качественная оценка: тонкостенный. [8]
Толщина стенки — качественная оценка: толстостенный (слегка). [8] - Строение субгимения
- Строение субгимения: гифальная. [8]
Кожица шляпки
- Оптический вид гиф кожицы шляпки
- Оптический вид гиф кожицы шляпки: гиалиновый. [8]
- Расположение гиф кожицы шляпки
- Расположение гиф кожицы шляпки: радиальный. [8]
Расположение гиф кожицы шляпки: переплетённые. [8] - Длина элементов кожицы шляпки
- Длина элементов кожицы шляпки: 50–180 µm. [33]
- Ширина элементов кожицы шляпки
- Ширина элементов кожицы шляпки: 4–10 µm. [8]
Ширина элементов кожицы шляпки: 4–8 µm. [33]
Химические реакции
Споры
- Среднее отношение длины споры к ширине
- Среднее отношение длины споры к ширине: 1,7 (стандартное отклонение: 0,15, среднее значение). [8] [7]
- Наличие придатка рубчика базидиоспоры
- Наличие придатка рубчика базидиоспоры: присутствует (относительно крупный). [8]
- Цвет спор под микроскопом
- Цвет спор под микроскопом: гиалиновый. [5]
Цвет спор под микроскопом: гиалиновый. [8] - Длина споры
- Длина споры: 4,5–6 µm. [5]
Длина споры: 5,5–7,2 µm. [33]
Длина споры: 4–6,5 µm. [8]
Длина споры: 5,2 µm (среднее значение). [8] - Отношение длины споры к ширине
- Отношение длины споры к ширине: 1,4–2. [8]
Отношение длины споры к ширине: 1,25–1,38. [33] - Форма споры
- Форма споры: эллипсоидный. [5]
Форма споры: цилиндрический. [5]
Форма споры: эллипсоидный (широкий). [33]
Форма споры: эллипсоидный. [8]
Форма споры: эллипсоидный (удлинённый). [8] - Толщина оболочки споры
- Толщина оболочки споры: тонкостенный. [8]
Трама гименофора
Материал и методы исследований
Микроскопические данные — источник и ограничения
Материал: Выборка [61/3/2]: 61 спор из 3 плодовых тел и 2 коллекций. Совокупность измерений не отождествлялась с полным списком образцов, исследованных в публикации.
Объем прочтения: Фрагменты источников.
Прочитан фрагмент источника; полный текст и методы не были проверены.
Ограничения: Среднее и отклонение выборки не являются границами отдельного Q.
- Результаты, приведённые в источниках — Число спор на базидии
- Liczba zarodników na jednej podstawce wynosi 4. [33] [8]
- Результаты, приведённые в источниках — Ширина гиф трамы
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [33]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Результаты, приведённые в источниках — Длина споры
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [33] - Результаты, приведённые в источниках — Ширина споры
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [33]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [33]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [33]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [33]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [33]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [33]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [33]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [33]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [33]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [33]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [33]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [33]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [33]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [33]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [33]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [33]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
Материал и методы
Индия: Mehmood et al. (2022) описали две коллекции из Бхимбата в Драссе, 19 и 20 августа 2021 г., TMKVYPS21-39 и 21–43. Они указали n = 20 спор без однозначного разделения выборки между коллекциями. Срезы исследовали в 5% KOH и 1% конго красном. Трехчленные записи размеров и Q сохранены по источнику; ввиду отсутствия определения среднего статистического показателя он не был произвольно подписан как среднее. Последовательность OM977115 из 21–39 показала 100% сходства с MW628104. В тексте методы указывают на MEGA-X, а подпись к рисунку — MEGA6.0; расхождение остается при исследовании.
Китай: Cui et al. (2026), секция 74: выборка [61/3/2] означает 61 спор из 3 плодовых тел и 2 коллекций. Не менее 90% измерений длины укладывается в 4,5–6 мкм, а полные пределы составляют 4–6,5 мкм; ширина имеет полные пределы 2,5–4 мкм. Qm 1,7 ± 0,15 является средним со стандартным отклонением выборки. Препараты монтировали в 5% KOH, конго красный применяли по необходимости, а амилоидность проверяли реактивом Мельцера. Для других структур указан также фазовый контраст 1000×. СЭМ не приписывалась этому виду по умолчанию. Рис. 93 взят из HKAS106635 и сам по себе не идентифицирует всю выборку.
Северная Европа: Heilmann-Clausen et al. (2017) приводят в общей методике не менее 20 случайно выбранных спор на коллекцию и препараты в 2% KOH или 5–10% NH3. Этому виду не приписывались произвольно ни n = 20, ни обе среды одновременно. Таблица 1 связывает поименованные коллекции из Словакии, Дании и Нидерландов с номерами образцов и последовательностей; сами годы и коды коллекций не определяют месяцев плодоношения.
Считанные местонахождения
Польша: Полная карточка grzyby.pl содержит 15 датированных записей GRej, включая повторные подтверждения местонахождений. Это локальные наблюдения с 2006 по 2023 гг., а не оценка численности по всей Польше. Выбранные даты включают октябрь, ноябрь и 6 декабря 2020 г. возле Дембогуры. Wojewoda (2003), запись T. cingulatum, описывает сбор с Батовицкого кладбища в Кракове за 1998 г. и указывает октябрь; под T. ramentaceum приводит историческую запись из Буковой пущи (Puszcza Bukowa), из Щецина и окрестностей. Даты публикации не переносились на даты сбора. Воеводства и точные местонахождения без соответствующего общего идентификатора остаются в сохраненной записи.
Зарубежный ареал: В анализе за 2017 г. присутствуют сборы MC03-252 из Гавешовой в Словакии, датский неотип MC96-134, другой датский сбор MC96-170 из Борума и нидерландский MEN95210 из Boekweitveentje в Дренте. Китайский материал включает Сычуань (Кандин/Гонггашань, 2700 м; Пинву, 2500 м) и Юньнань (Шангри-Ла/Вонгшуй, 3400 м). Индийская статья также перечисляет европейские страны на основе более старых работ; процитированные книги не считывались автоматически целиком, и этот список не признавался актуальным полным ареалом распространения.
Доказательство микоризы с ивой
Исследованный корень: Leake et al. (2004) описали эктомикоризные кончики корней ивы ползучей Salix repens в Newborough Warren. Исследовались три группы образцов корней; авторы наблюдали микоризные чехлики и тяжи ризоморф, а образцы имели профиль ITS-RFLP типа I, соответствующий исследуемому симбионту Monotropa. Это доказательство, выходящее за рамки простого соседства деревьев. Таблица 5 приводит для этих трех образцов Salix «nd» для mtLSU и региона ITS, поэтому это не означает трех независимо секвенированных образцов. Вид общего типа определяли на основе репрезентативных последовательностей и сравнения с плодовыми телами.
Круг партнеров: Это прямое доказательство касается Salix repens. Запись относительно Salix caprea в Millers Dale описывает Monotropa, растущую под ивой, и не содержит отдельного анализа корней этой ивы. В данных зафиксирован доступный род Salix; точное название ивы ползучей остается при исследовании. Этим методом не были подтверждены все виды ив или другие деревья, упоминаемые в описаниях местообитаний.
Скрининговое исследование экстрактов
Материал 46/07: Otto (2017), приложение A3, отмечает материал T. cingulatum 46/07, обозначенный «fr». Для метанольного и этилацетатного экстрактов таблица указывает на отсутствие ингибирования в трех тестах, обозначенных SEPTTR, PHYTIN и CLADCU. В колонке BOTRCI указано «n.t.» — не исследовалось; эта запись не была заменена отрицательным результатом. Это качественные результаты конкретного материала и тестов, без выводов о хозяйственном или лекарственном применении вида.
Границы данных: Из изученной выдержки не удалось установить концентрации, количество повторностей, числовую конечную точку, а также номер гербарного образца и место сбора. Не были автоматически расшифрованы все коды тест-организмов. Прямой адрес репозитория вернул HTML-страницу вместо PDF; сохраненное прочтение таблицы не является декларацией прочтения всей диссертации. Результаты не переносились на отваренные плодовые тела, безопасность пищевых продуктов или клиническую эффективность.
Состав материала из Каргила — объем исследования
Материал и повторности: Mayirnao и др. (2025) собрали зрелые плодовые тела в Драсе в районе Каргил в сентябре 2022 г., на высоте 3276 м над уровнем моря. Были разделены профиль метаболитов ГХ–МС, определения сухой массы и молярные соотношения. Три повторности определений не определяют количество независимых плодовых тел. За подробными протоколами и молекулярной идентификацией авторы отсылают к приложению; приложение не просматривалось.
Значение процентов: Таблица 1 приводит процентный состав профиля метаболитов ГХ–МС. Это не массовый процент компонента в плодовом теле. Сохранены каждое показание столбца T. cingulatum и исходные SD. Отдельно остаются результаты необнаружения: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Необнаружение данным методом не означает абсолютного отсутствия вещества. Гидроксиглутаровая кислота встречается в таблице в двух разных строках; различающаяся количественная запись и необнаружение не объединялись.
Антиоксидантные тесты: В разделе 3.10 авторы привели для T. cingulatum IC50 = 9,03 мг/мл в тесте связывания пероксида водорода и 5,52 мг/мл в тесте восстановления феррицианида калия. Это результаты тестов, а не подтверждение лечения, супплементации или безопасности употребления. Основной текст не раскрывает всех деталей протокола тестов; они не заменялись тестом DPPH или другой конечной точкой. В аннотации была выделена восстанавливающая активность V. bombycina, несмотря на более низкое значение, указанное для T. cingulatum в разделе результатов.
Верификация произрастания — охват и ограничения
Материал: Dokładny zapis źródłowy dla BG
Объём просмотра: Фрагменты источников.
Просмотрен фрагмент источника; полный текст и методы не проверялись.
Дата пересмотра: 10.11.2026.
Ограничения: Объём вытекает из приведённого источника; без распространения на другие территории или периоды.
Объём обработки
Перед завершением запись требует дополнения или проверки.
- Новые источники требуют учёта сведений, обнаруженных в ходе обзора.
Правовая основа и объём оценки
Нормы для локации: Польша
Основание сведений об охране
Вид не указан в приложениях к постановлению об охране видов грибов (Dz.U.2014/1408).
Основание сведений о торговле
Вид не указан в перечне допуска к обороту или производству грибных продуктов (Dz.U.2026/258,załącznik1); это не является классификацией съедобности.
Аналитические результаты
Отдельные исходные аналитические результаты
- Изолейцин — доля в профиле GC–MS
- Результат определения составляет 0,59 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,14 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Лейцин — доля в профиле GC–MS
- Результат определения составляет 0,44 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,08 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Лизин — доля в профиле GC–MS
- Результат определения составляет 0,65 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,04 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Фенилаланин — доля в профиле GC–MS
- Результат определения составляет 0,58 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,15 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Треонин — доля в профиле GC–MS
- Результат определения составляет 2,22 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,45 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Валин — доля в профиле GC–MS
- Результат определения составляет 1,12 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,09 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Аланин — доля в профиле GC–MS
- Результат определения составляет 2,64 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,59 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Аспарагин — доля в профиле GC–MS
- Результат определения составляет 0,14 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,01 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Аспарагиновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,26 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,07 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глутаминовая кислота — доля в профиле GC–MS
- Результат определения составляет 0,98 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,35 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глицин — доля в профиле GC–MS
- Результат определения составляет 2,11 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,78 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Пролин — доля в профиле GC–MS
- Результат определения составляет 0,59 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,28 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Серин — доля в профиле GC–MS
- Результат определения составляет 1,0 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,14 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Ацетиллизин — доля в профиле GC–MS
- Результат определения составляет 0,21 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,03 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Эрготионеин — доля в профиле GC–MS
- Результат определения составляет 0,16 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,03 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глицилпролин — доля в профиле GC–MS
- Результат определения составляет 0,81 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,16 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- 5-оксопролин — доля в профиле GC–MS
- Результат определения составляет 7,95 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,04 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Аденозин — доля в профиле GC–MS
- Результат определения составляет 0,27 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,1 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Этаноламин — доля в профиле GC–MS
- Результат определения составляет 1,36 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,28 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Метиладенозин — доля в профиле GC–MS
- Результат определения составляет 0,19 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,01 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Урацил — доля в профиле GC–MS
- Результат определения составляет 0,59 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,22 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Мочевина — доля в профиле GC–MS
- Результат определения составляет 1,88 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,12 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Уридин — доля в профиле GC–MS
- Результат определения составляет 1,04 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,17 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Дезоксигалактоза — доля в профиле GC–MS
- Результат определения составляет 0,04 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,01 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Эритроза — доля в профиле GC–MS
- Результат определения составляет 0,2 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,05 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Фруктоза — доля в профиле GC–MS
- Результат определения составляет 1,55 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,41 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Фруктопираноза — доля в профиле GC–MS
- Результат определения составляет 0,42 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,06 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Талоза — доля в профиле GC–MS
- Результат определения составляет 0,86 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,06 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Трегалоза — доля в профиле GC–MS
- Результат определения составляет 18,67 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,69 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Ксилулоза — доля в профиле GC–MS
- Результат определения составляет 0,25 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,08 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- α-маннобиоза — доля в профиле GC–MS
- Результат определения составляет 0,28 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,01 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Дезокситетроновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,22 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,04 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глюконовая кислота — доля в профиле GC–MS
- Результат определения составляет 1,55 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,26 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глицериновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,62 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,23 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Гидроксиглутаровая кислота — доля в профиле GC–MS
- Результат определения составляет 0,29 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,1 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Рибоновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,19 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,06 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Ксилоновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,52 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,11 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Эритритол — доля в профиле GC–MS
- Результат определения составляет 1,28 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,37 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глюцитол — доля в профиле GC–MS
- Результат определения составляет 10,33 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 2,42 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Глицерол — доля в профиле GC–MS
- Результат определения составляет 5,71 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,45 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Мезоэритритол — доля в профиле GC–MS
- Результат определения составляет 0,05 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,03 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Миоинозитол — доля в профиле GC–MS
- Результат определения составляет 1,05 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,2 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Рибитол — доля в профиле GC–MS
- Результат определения составляет 2,36 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,18 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Миристиновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,65 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,03 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Пальмитиновая кислота — доля в профиле GC–MS
- Результат определения составляет 3,7 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,66 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Стеариновая кислота — доля в профиле GC–MS
- Результат определения составляет 1,8 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,41 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Олеиновая кислота — доля в профиле GC–MS
- Результат определения составляет 6,05 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,5 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Пальмитоэлаидиновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,22 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,11 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Моноолеоилглицерол — доля в профиле GC–MS
- Результат определения составляет 1,47 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,14 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Монопальмитат глицерола — доля в профиле GC–MS
- Результат определения составляет 0,39 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,11 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Линолевая кислота — доля в профиле GC–MS
- Результат определения составляет 5,3 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,08 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Азелаиновая кислота — доля в профиле GC–MS
- Результат определения составляет 1,12 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,34 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Стигмастерол — доля в профиле GC–MS
- Результат определения составляет 0,11 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,0 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Лимонная кислота — доля в профиле GC–MS
- Результат определения составляет 1,77 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,47 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Этилмалоновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,29 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,11 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Фумаровая кислота — доля в профиле GC–MS
- Результат определения составляет 1,15 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,13 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Гидроксималоновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,34 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,04 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Малеиновая кислота — доля в профиле GC–MS
- Результат определения составляет 4,31 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,64 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Метилмалеиновая кислота — доля в профиле GC–MS
- Результат определения составляет 0,07 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,02 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Метилянтарная кислота — доля в профиле GC–MS
- Результат определения составляет 0,23 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,04 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Пировиноградная кислота — доля в профиле GC–MS
- Результат определения составляет 0,22 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,001 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Щавелевая кислота — доля в профиле GC–MS
- Результат определения составляет 0,15 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,06 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Шикимовая кислота — доля в профиле GC–MS
- Результат определения составляет 0,37 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,1 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Янтарная кислота — доля в профиле GC–MS
- Результат определения составляет 1,0 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,17 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Фосфорная кислота — доля в профиле GC–MS
- Результат определения составляет 0,6 % профиля GC–MS. Массовая основа не указана в источнике. Неопределенность: 0,1 % профиля GC–MS (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: GC–MS после дериватизации MSTFA; процент состава профиля метаболитов по таблице 1.[36] [37]
- Азот
- Результат определения составляет 12,84 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,35 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: анализатор CHNS.[36] [37]
- Сера
- Результат определения составляет 1,02 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,17 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: анализатор CHNS.[36] [37]
- Фосфор
- Результат определения составляет 0,94 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,03 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: детальный метод для P не был однозначно определен в прочитанной части методов.[36] [37]
- Натрий
- Результат определения составляет 22,01 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 3,83 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: пламенная фотометрия.[36] [37]
- Калий
- Результат определения составляет 31,2 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,75 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: пламенная фотометрия.[36] [37]
- Кальций
- Результат определения составляет 0,68 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,12 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Магний
- Результат определения составляет 0,67 мг/г. Результат относится к сухой массе исследуемого материала. Неопределенность: 0,01 мг/г (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Алюминий
- Результат определения составляет 39,07 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 3,26 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Медь
- Результат определения составляет 53,95 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 2,4 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Железо
- Результат определения составляет 223,05 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 38,74 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Никель
- Результат определения составляет 22,41 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 3,93 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Хром
- Результат определения составляет 30,92 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 2,94 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: ICP–MS.[36] [37]
- Марганец
- Результат определения составляет 55,6 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 5,75 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: ICP–MS.[36] [37]
- Селен
- Результат определения составляет 26,43 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 1,09 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: ICP–MS.[36] [37]
- Молибден
- Результат определения составляет 61,22 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 5,91 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: ICP–MS.[36] [37]
- Цинк
- Результат определения составляет 30,58 микрограмма на грамм. Результат относится к сухой массе исследуемого материала. Неопределенность: 4,77 микрограмма на грамм (стандартное отклонение). Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: атомно-абсорбционная спектрометрия.[36] [37]
- Молярное соотношение OA/(Ca+Mg)
- Результат определения составляет 0,4. Метод по источнику: молярное соотношение, приведенное авторами; OA — щавелевая кислота, PA — фитиновая кислота.[36] [37]
- Молярное соотношение PA/Fe
- Результат определения составляет 0,16. Метод по источнику: молярное соотношение, приведенное авторами; OA — щавелевая кислота, PA — фитиновая кислота.[36] [37]
- Молярное соотношение PA/Ca
- Результат определения составляет 0,13. Метод по источнику: молярное соотношение, приведенное авторами; OA — щавелевая кислота, PA — фитиновая кислота.[36] [37]
- Молярное соотношение PA/Zn
- Результат определения составляет 6,33. Метод по источнику: молярное соотношение, приведенное авторами; OA — щавелевая кислота, PA — фитиновая кислота.[36] [37]
- Общий белок
- Результат определения составляет 312 мг/г. Результат относится к сухой массе исследуемого материала. Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: метод Брэдфорда.[36] [37]
- Общие фенолы — определение по Фолину–Чокальтеу
- Результат определения составляет 38,33 мг/г. Результат относится к сухой массе исследуемого материала. Статистика: среднее. n = 3 (повторы, указанные в источнике; биохимические измерения). Метод по источнику: метод Фолина–Чокальтеу; калибрант не указан однозначно в прочитанной части методов.[36] [37]
Экологические исследования
Дополнительные источники распространения
Болгария: Assyov (2023) описал местонахождение в Боровце в горах Рила: 8 октября 2016 г. и 13 ноября 2020 г., образцы SOMF29917 и SOMF30896. Они росли под Salix caprea и Betula pendula в молодом смешанном хвойном лесу; присутствие берёзы в местообитании не является доказательством микоризы с берёзой. Два месяца сборов не определяют полного сезона страны. Историческую болгарскую запись названия T. ramentaceum от 1955 г. автор счёл сомнительной, без найденного образца.
Словакия: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), с. 28, приводит сбор S. Glejdura под ивами в арборетуме Борова гора в Зволене, 320 м над уровнем моря, 11 октября 1995 г. Год указывает итог списка находок от 1995 г. Просмотренная запись подтверждает октябрьское наблюдение, а не весь словацкий сезон. Название в источнике сохранило историческую запись авторства.
Великобритания: Norfolk Fungus Study Group публикует 20 записей из 17 местонахождений в 1988–2025 годах. Датированные записи приходятся на октябрь–декабрь; Felthorpe Woods имеет сбор от 22 декабря 1988 г. Реестр включает в том числе Whitlingham Marsh, Horsey Warren, Thetford и Holt. Связи с ивой или сосной записаны как наблюдаемое соседство, без автоматического подтверждения корневого партнёра. Данные из Норфолка не обобщались на полный сезон всей Великобритании.
Нидерланды: Атлас NDFF определяет вид как обычный на основе верифицированных наблюдений 2004–2023 годов. Отдельно он приводит категорию уязвимый из Красного списка 2008; частота встречаемости и категория угрозы описывают разные вопросы. Он указывает на бедный гумусом песок и связь с Salix repens. График фенологии смоделирован по наблюдениям 2000–2021; несчитанные числовые значения из него не переписывались.
Местообитание и встречаемость
Подтверждённый ареал распространения
Все области подтверждены в сохранённых исходных данных.
| Страна | Регионы и местонахождения | Плодоношение | Источники |
|---|---|---|---|
| Болгария | В сохранённых данных регионы не установлены | X–XI — минимальный диапазон наблюдений |
|
| Китай | Сычуань; Юньнань (Yunnan) | VIII–X — минимальный диапазон наблюдений |
|
| Чехия | Пльзенский край; Устецкий край | VII–XI |
|
| Дания | В сохранённых данных регионы не установлены | Не установлено |
|
| Великобритания | В сохранённых данных регионы не установлены | X–XII — минимальный диапазон наблюдений |
|
| Индия | Ладакх; Драс, Ладакх; Каргил, Ладакх | VIII — минимальный диапазон наблюдений | |
| Нидерланды | В сохранённых данных регионы не установлены | Не установлено |
|
| Польша | Лодзинское воеводство; Малопольское воеводство; Подляское воеводство; Западно-Поморское воеводство; Поморское воеводство; Семяновице-Слёнске; Любушское воеводство | X–XII — минимальный диапазон наблюдений |
|
| Словакия | В сохранённых данных регионы не установлены | X — минимальный диапазон наблюдений |
|
Источники
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- ŚredniQ i odchylenie standardowe próby
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka