
Їстівний

Потребує обробки

Установіть місцезнаходження, щоб побачити дані для свого регіону.
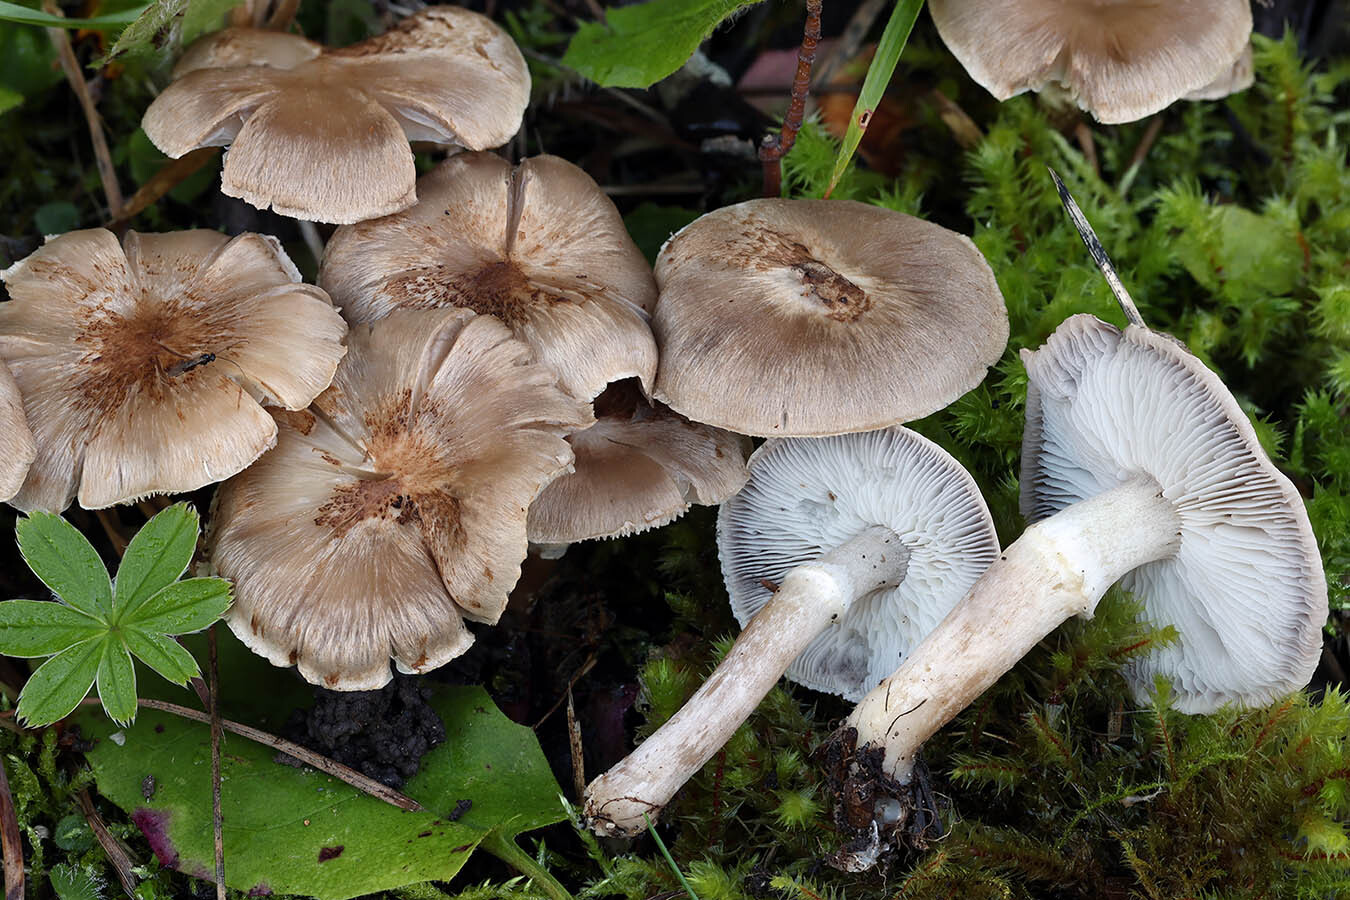
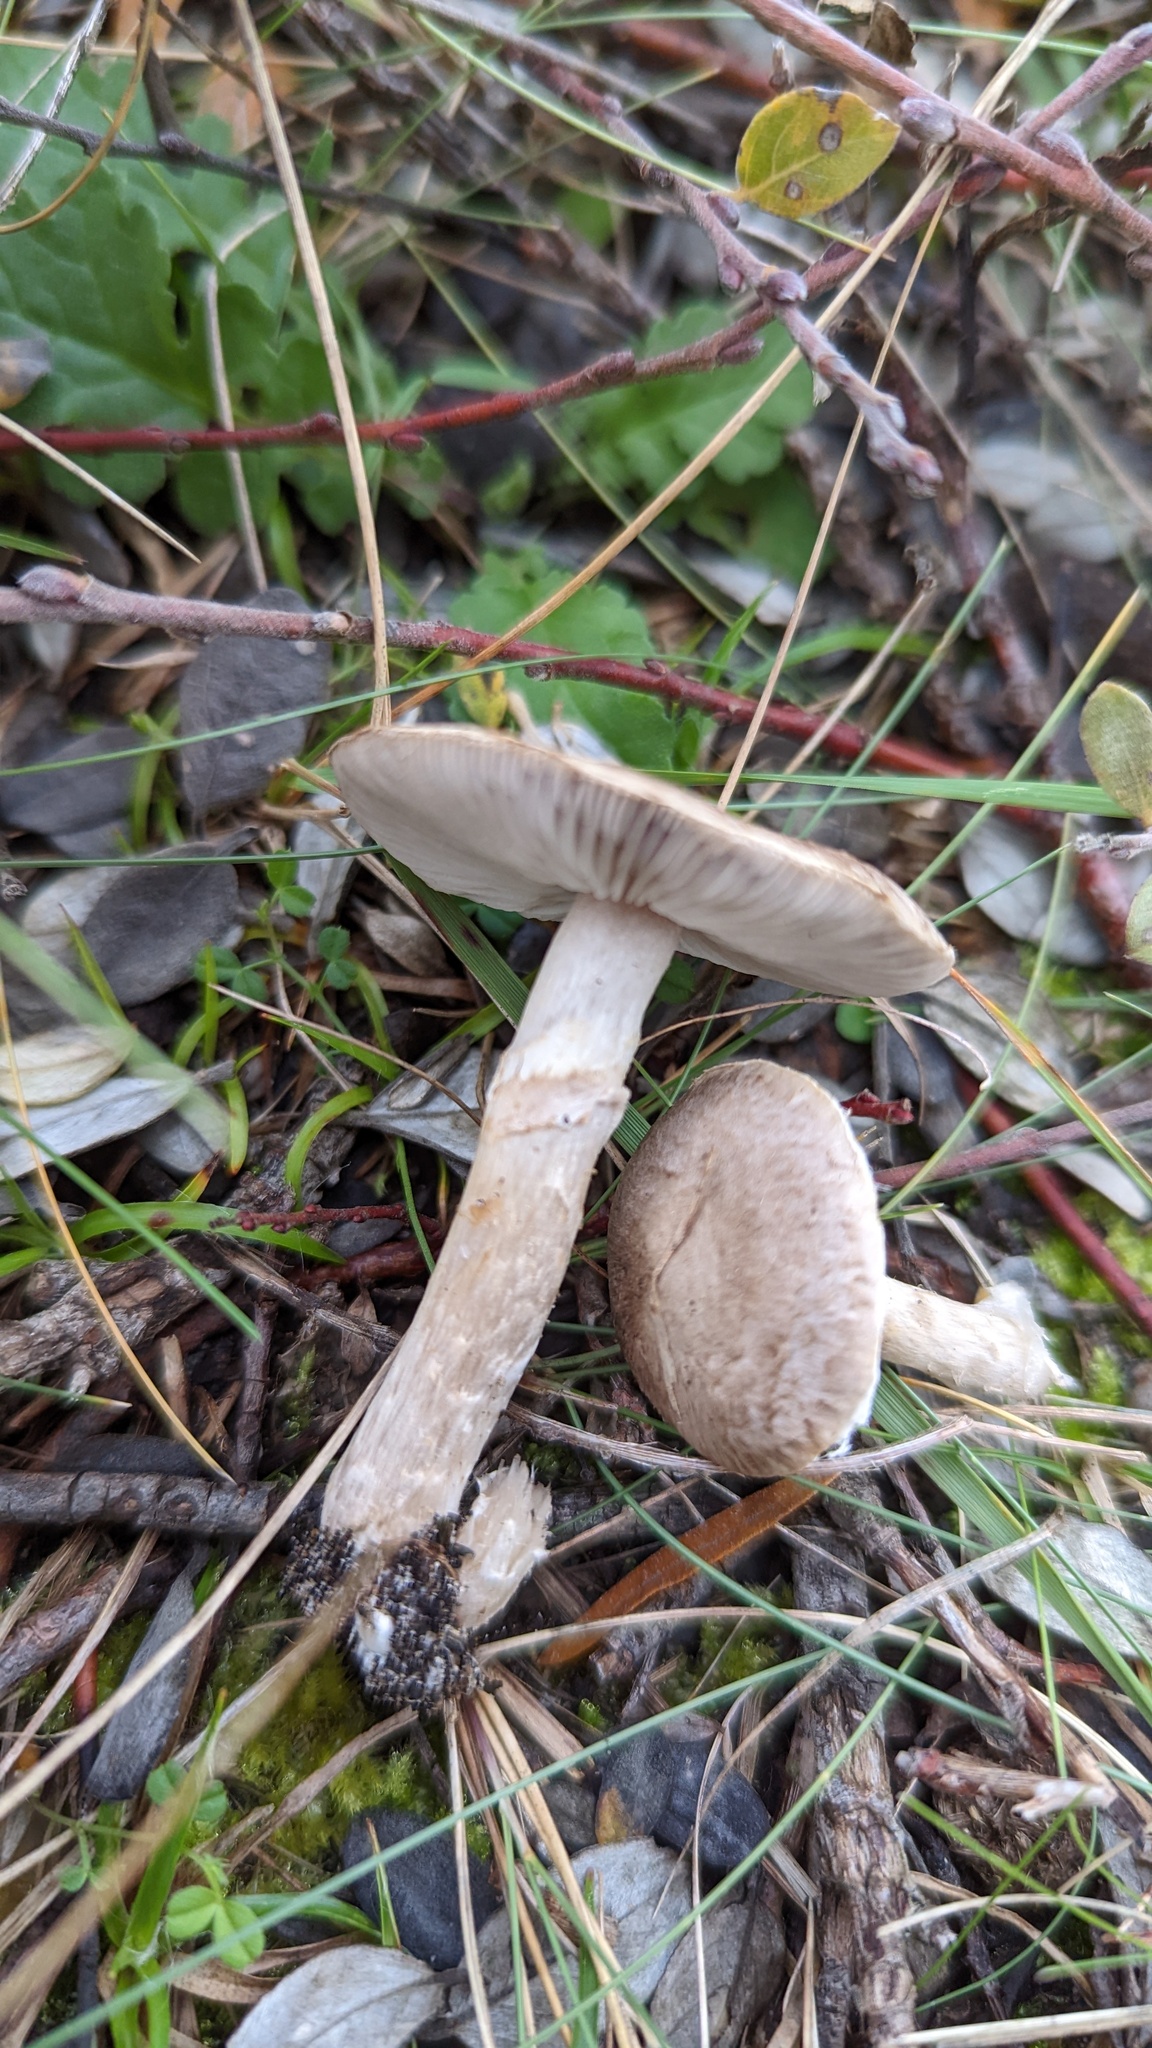
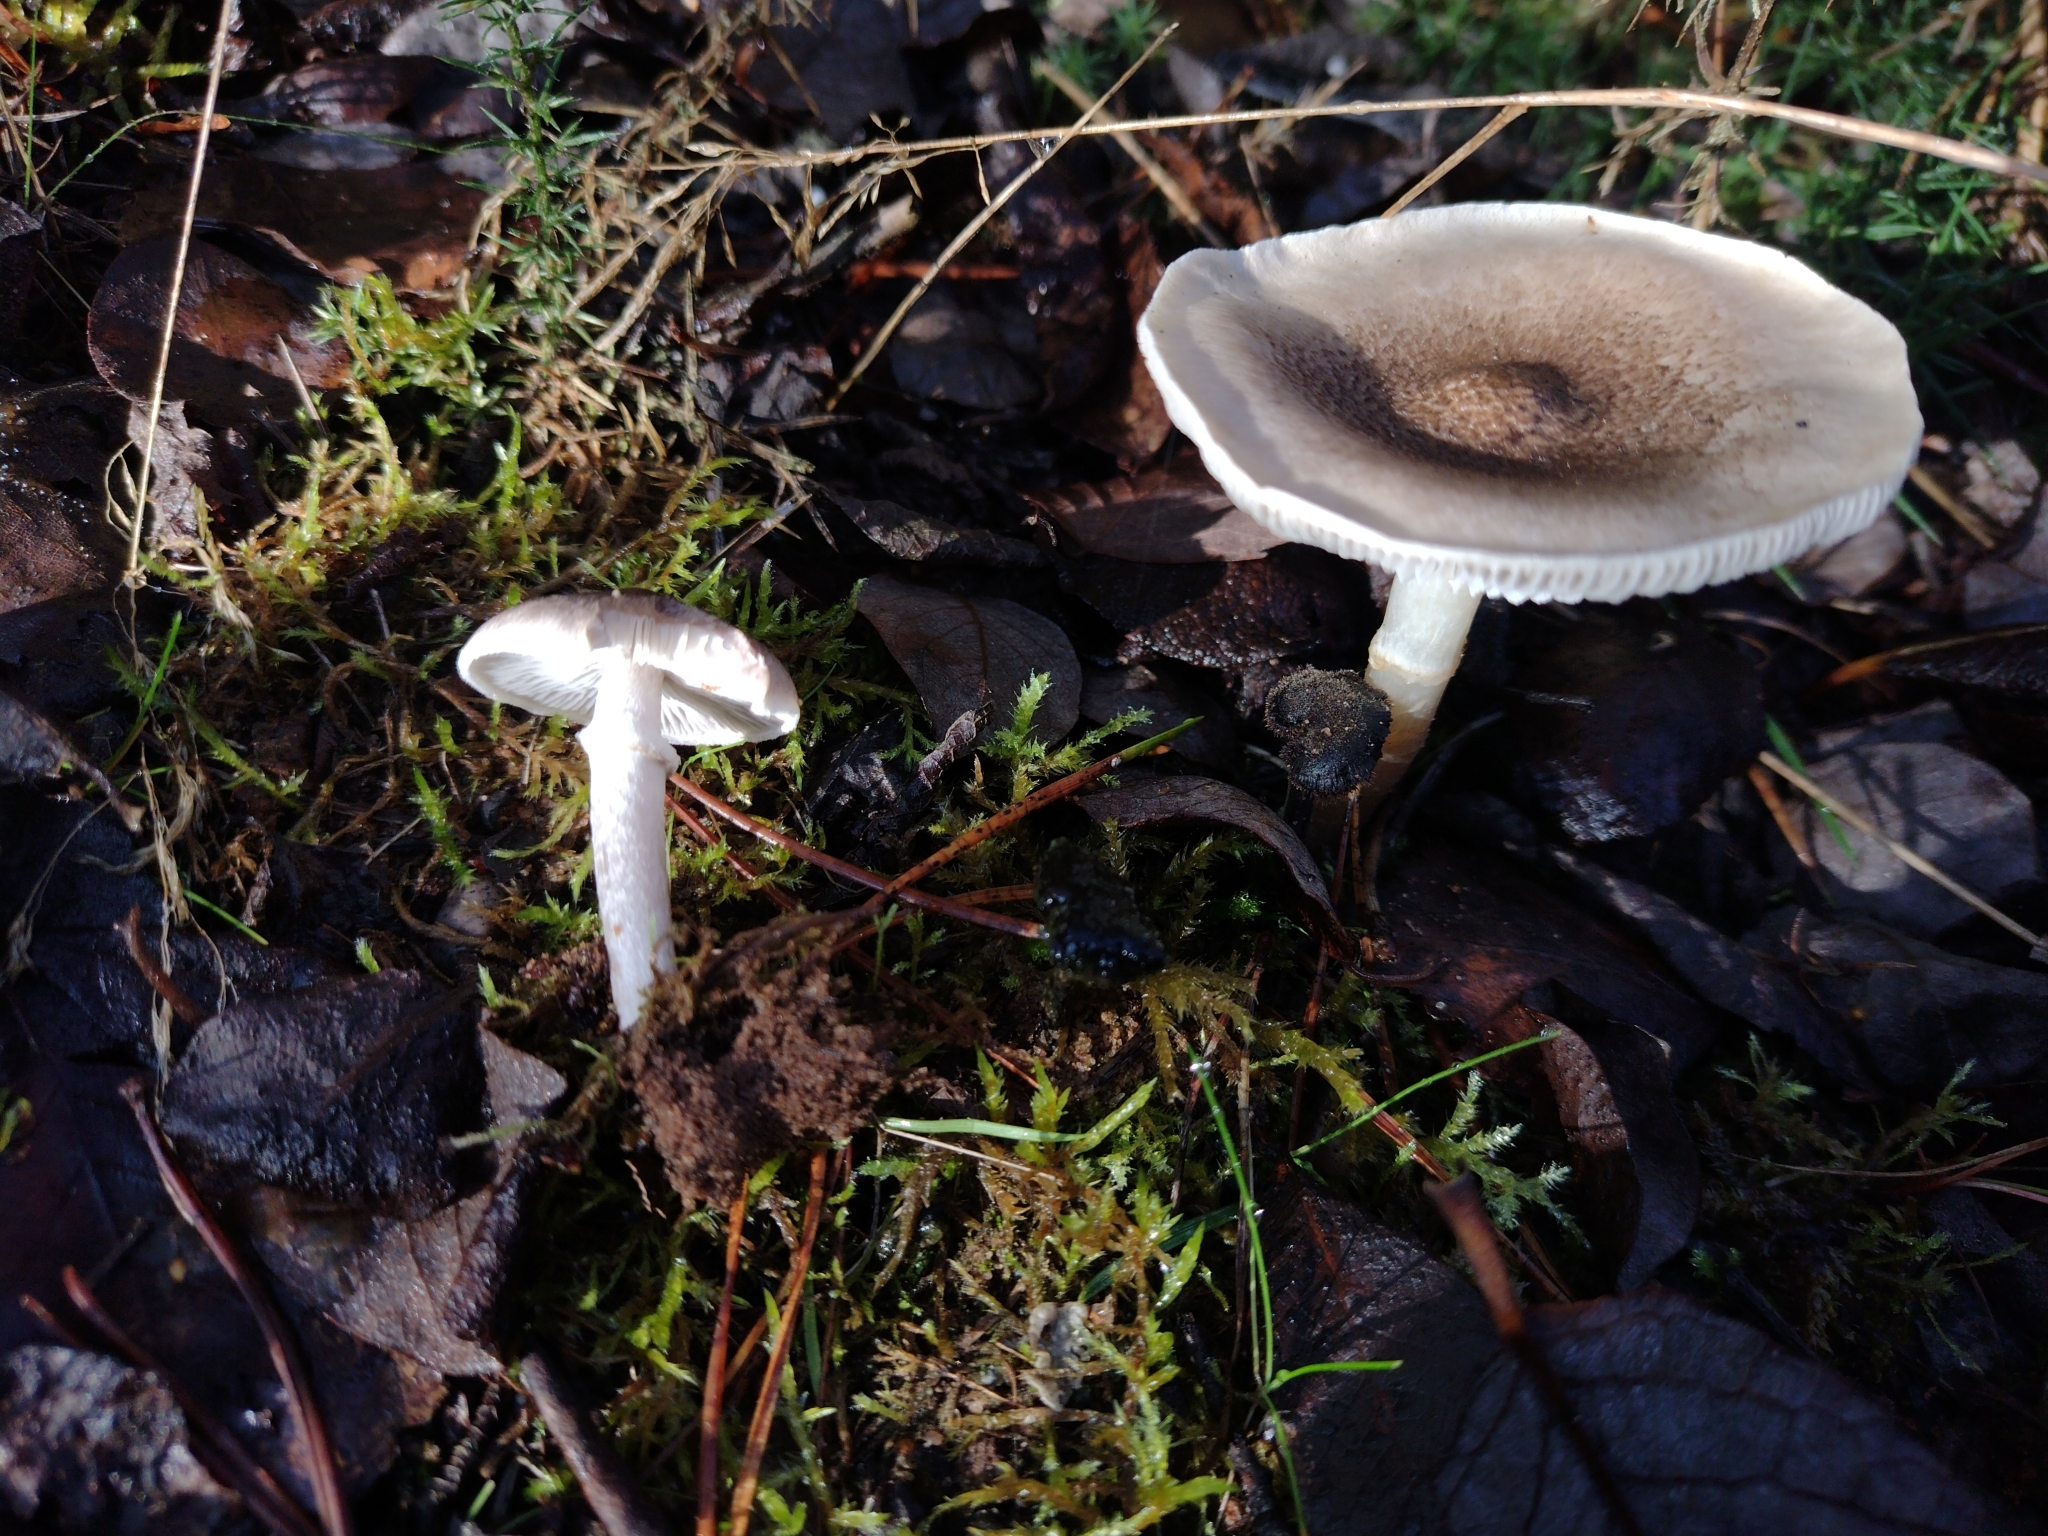
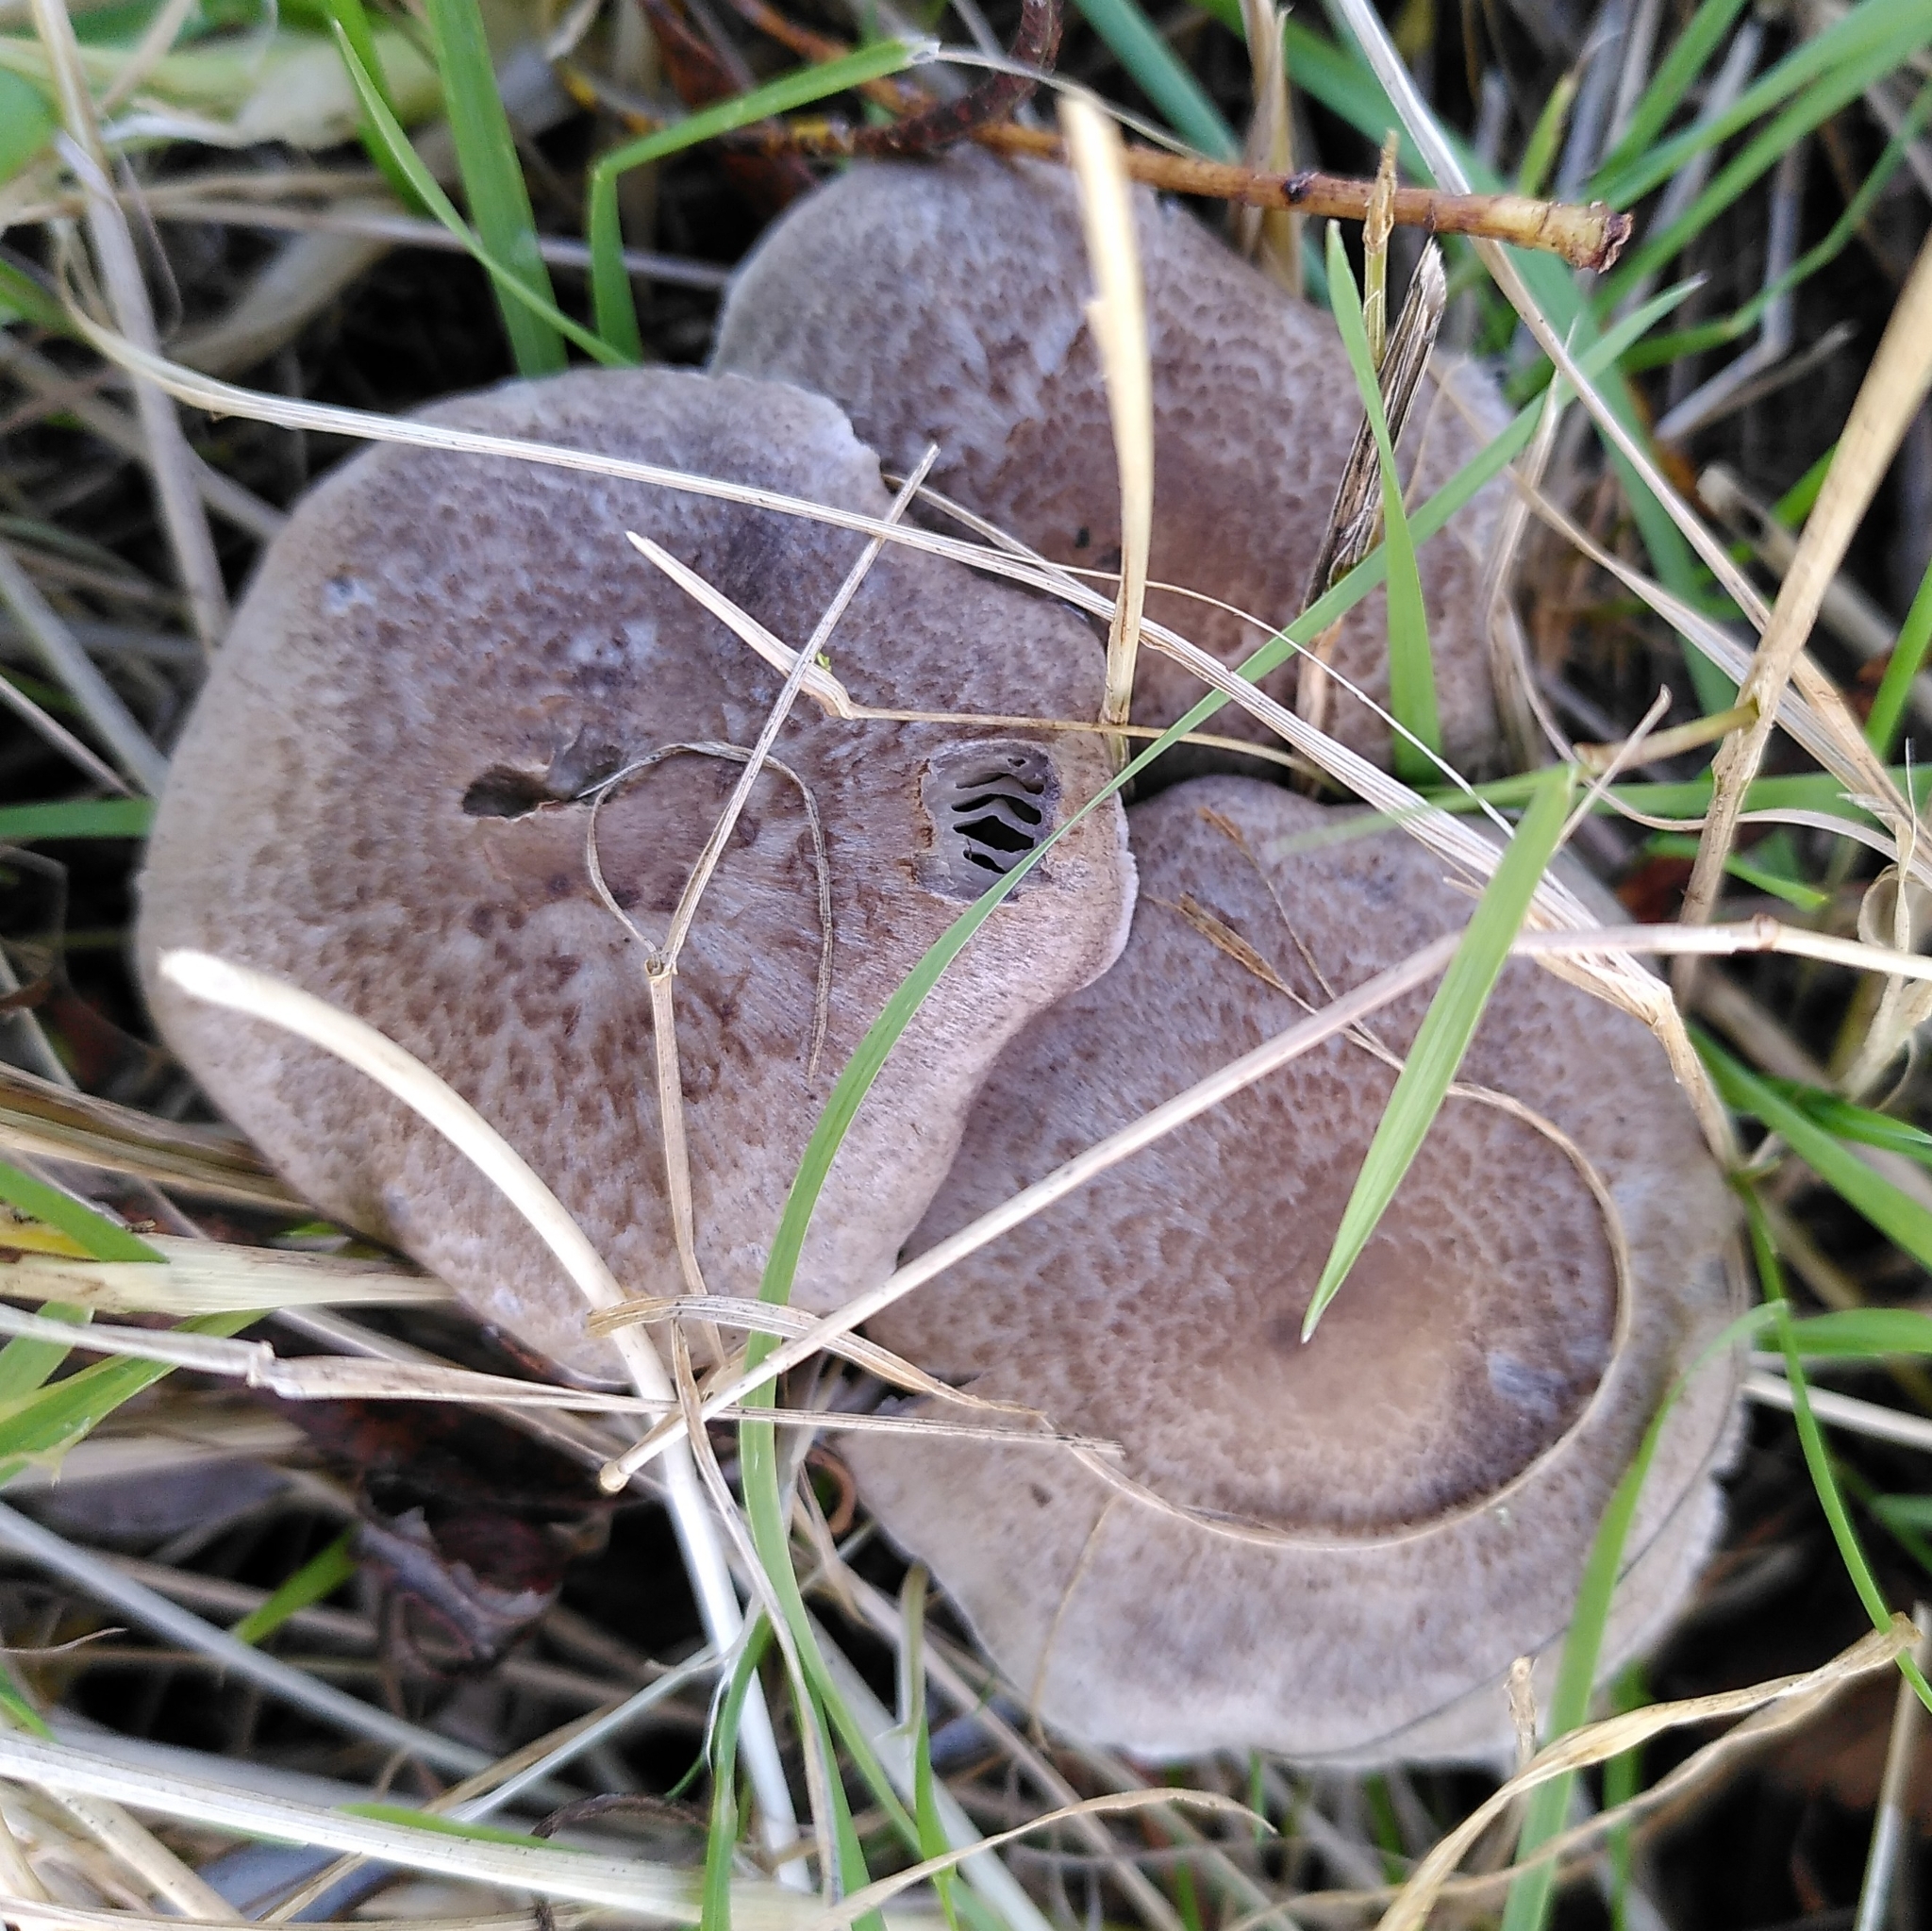
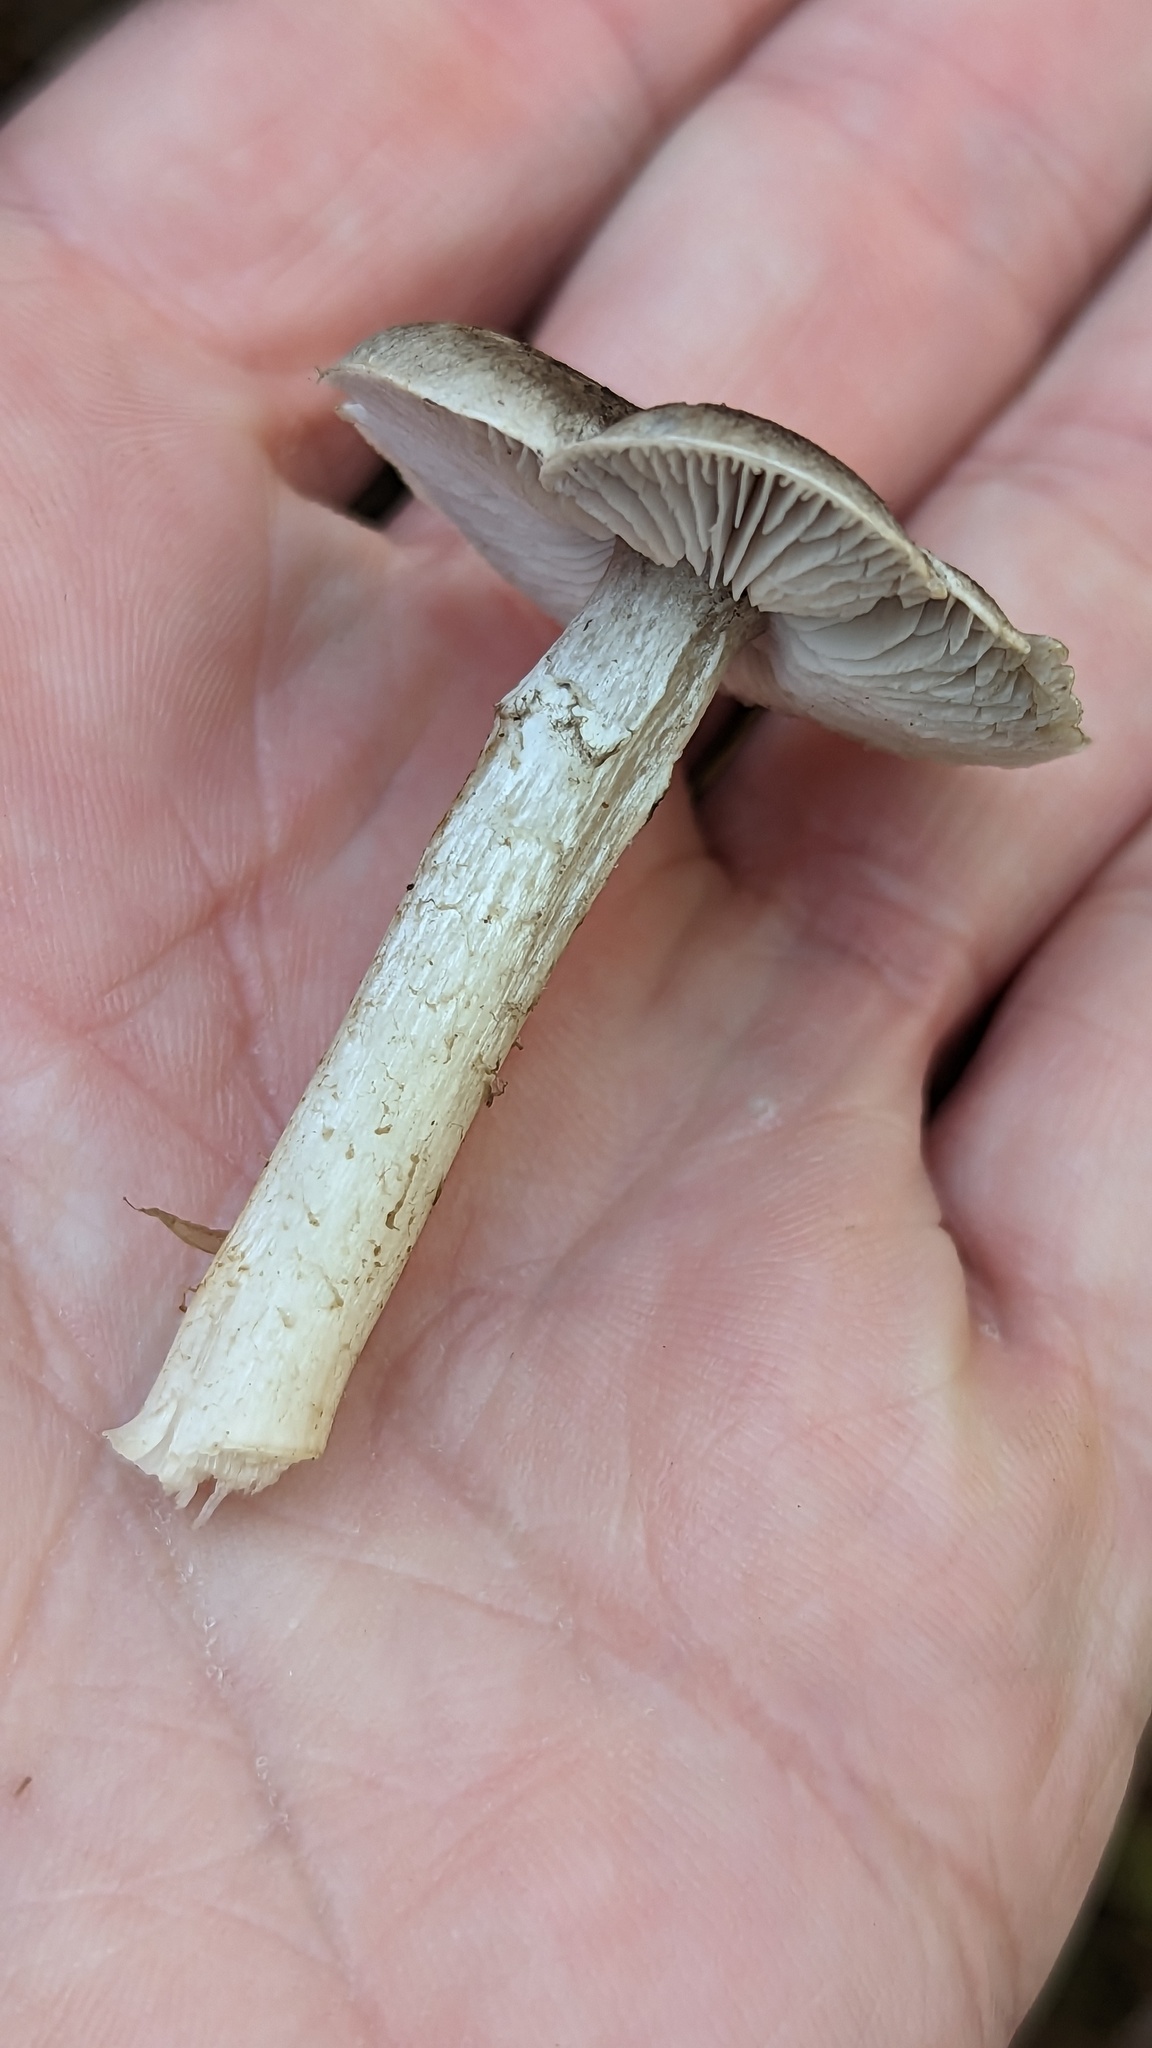
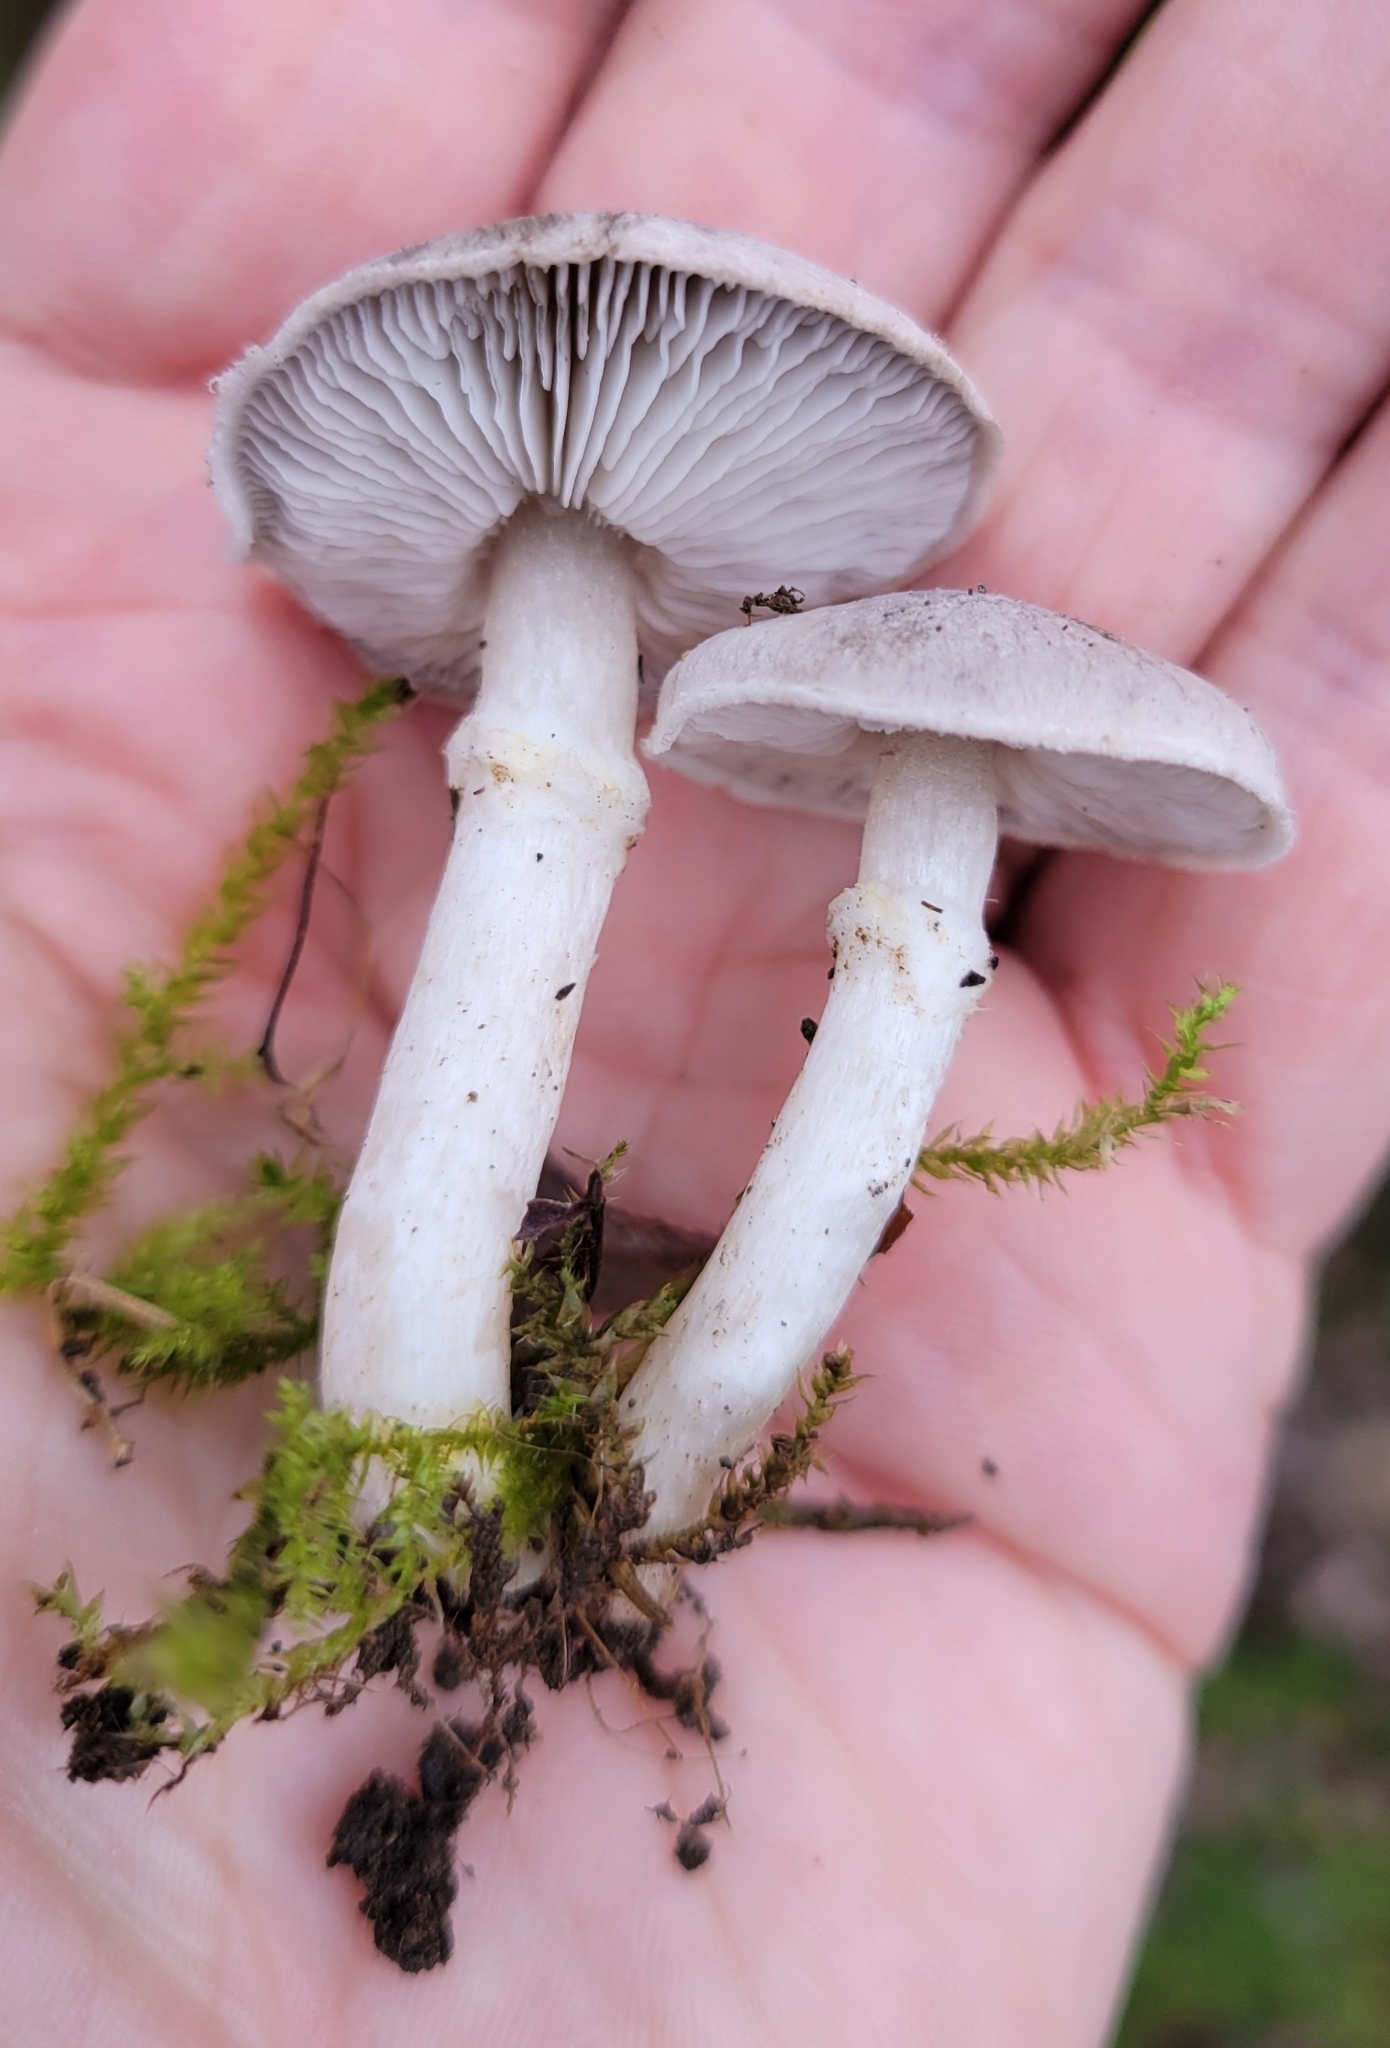
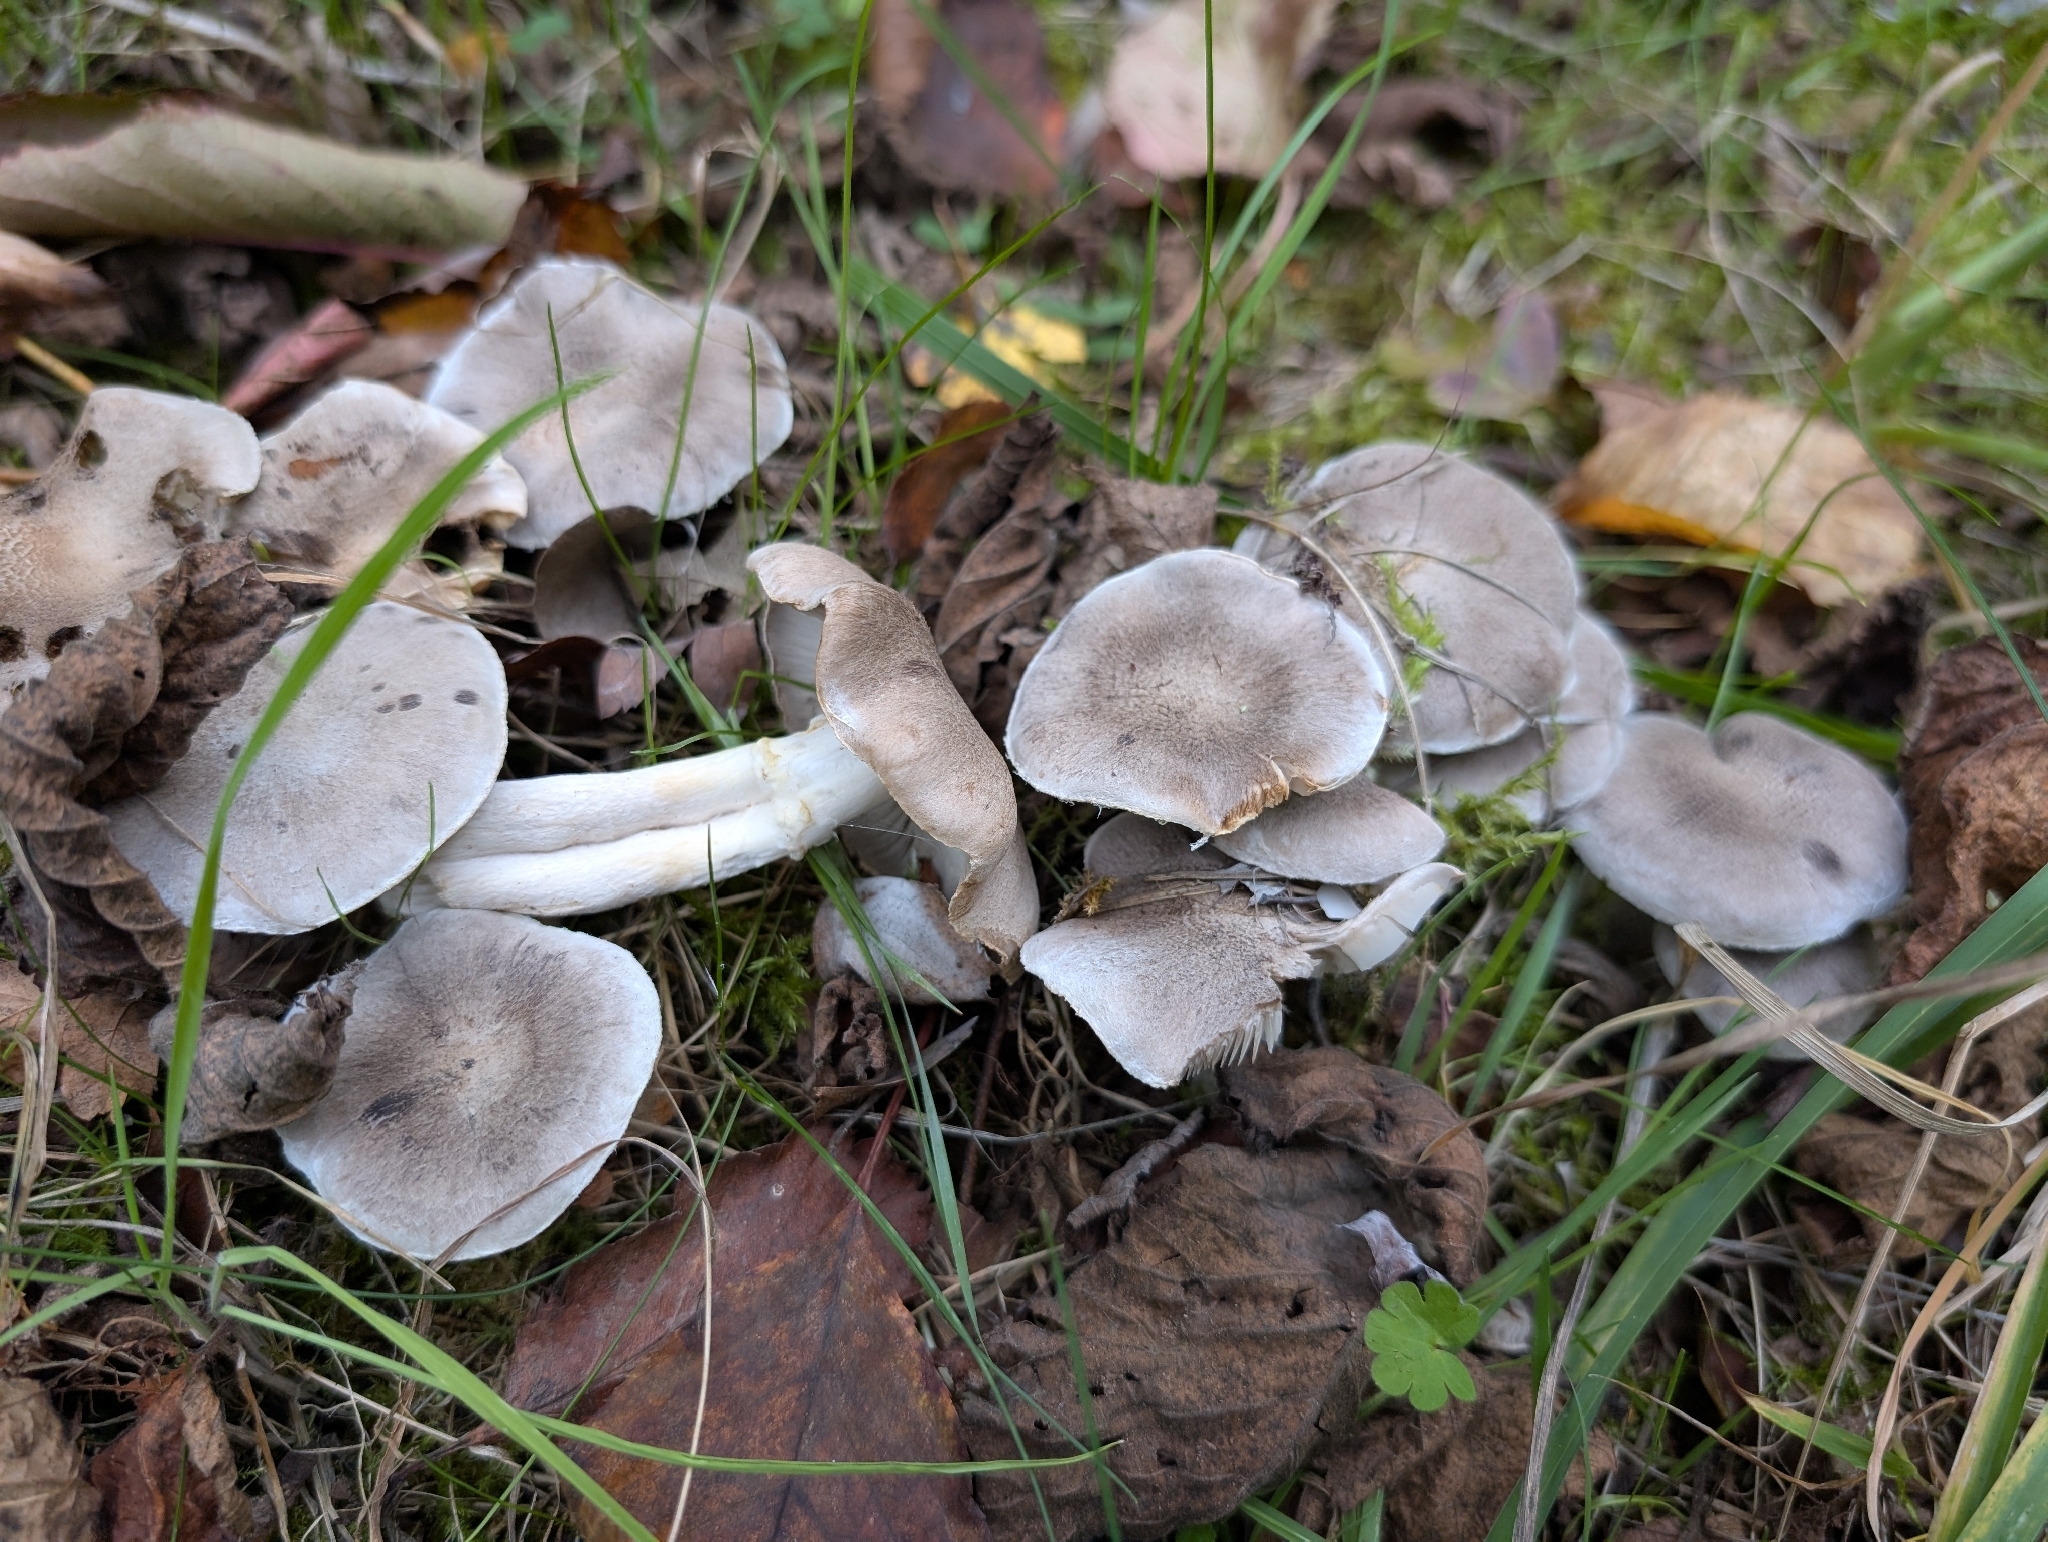


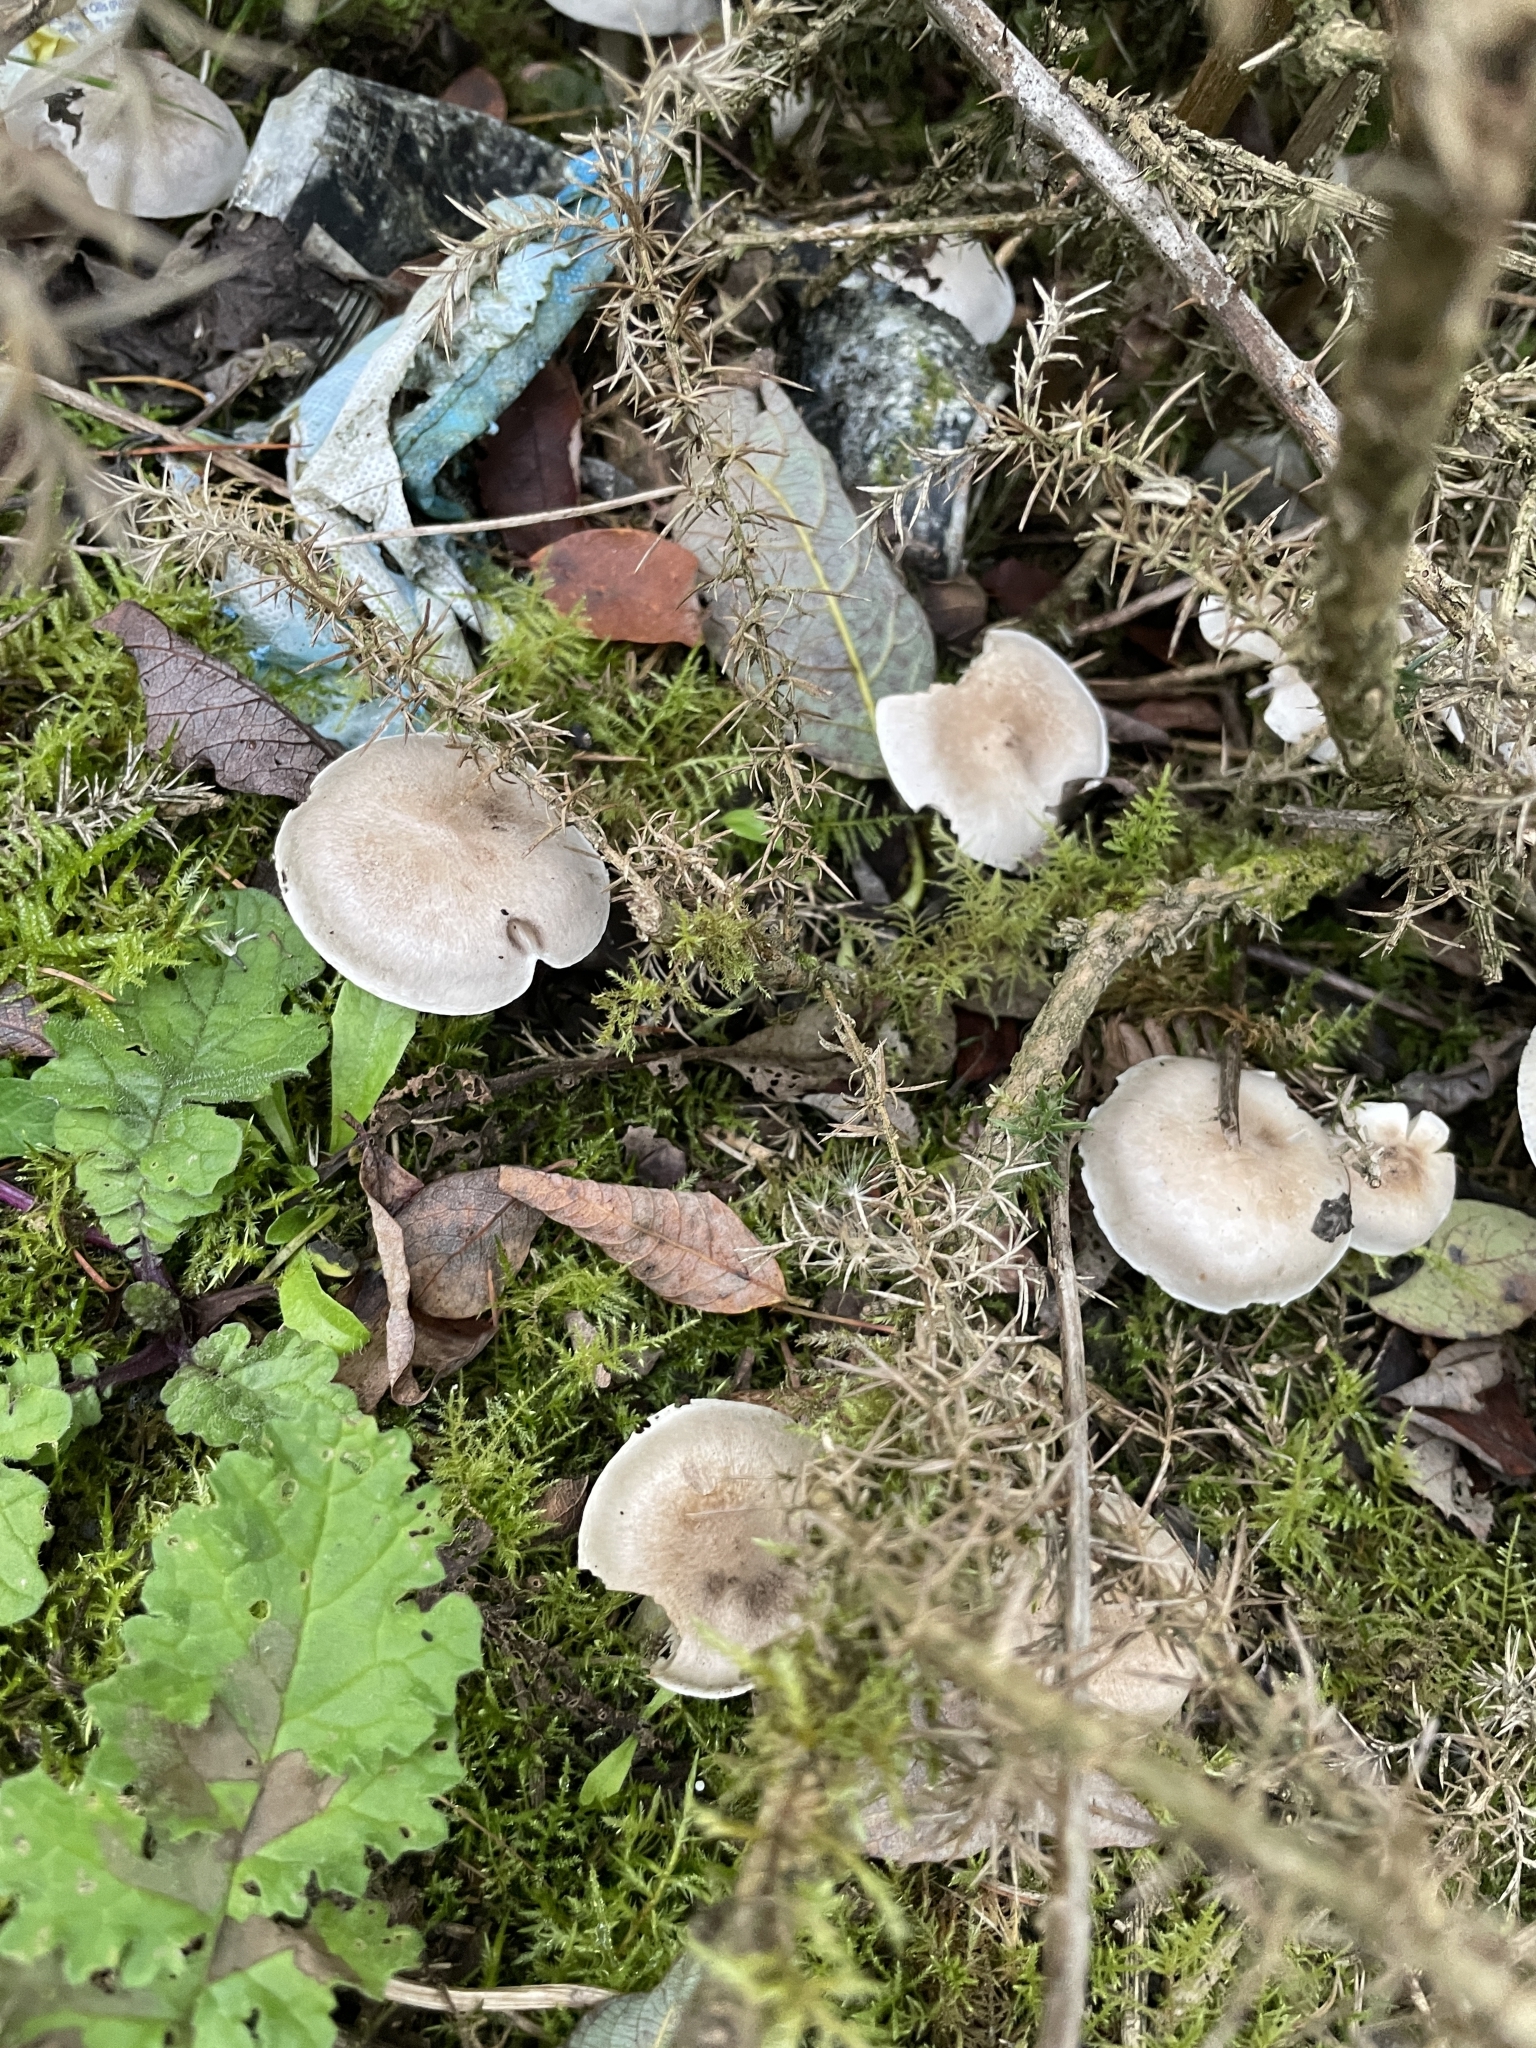
Рядовка оперезана (Tricholoma cingulatum) — порівняно рідкісний шапинковий гриб родини рядовкових. Вид вирізняється наявністю чіткого повстяного кільця на ніжці, що виділяє його серед інших сірих рядовок, дрібнолускатою сірою шапкою та вираженим борошняним запахом. Гриб утворює сувору мікоризу з різними видами верб, заселяючи вологі береги річок, заплави, дюни й кар'єри. У багатьох європейських країнах вид занесений до списків рідкісних видів і слугує індикатором збережених вербових ценозів.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
Шапинка
- Форма шапинки
- Форма шапинки: напівкулястий або дзвоникоподібний.
Форма шапинки: плоский.
Форма шапинки: опуклий.
Форма шапинки: опуклий (сплощений профіль). - Поверхня шапинки
- Поверхня шапинки: сухий.
- Покрив шапинки
- Покрив шапинки: повстиста.
Покрив шапинки: луската (дрібні лусочки).
Покрив шапинки: луската (дрібні лусочки, сіро-коричневий покрив).
Покрив шапинки: луската (дрібні лусочки, оливкові).
Покрив шапинки: луската (коричневі).
Покрив шапинки: луската (сіро-коричневий покрив). - Блиск поверхні шапинки
- Блиск поверхні шапинки: матовий.
- Колір шапинки
- Колір шапинки: сіруватий.
Колір шапинки: білий.
Колір шапинки: сірий (світлий відтінок).
Колір шапинки: сіро-коричневий. - Положення краю
- Положення краю: підгорнутий усередину.
у молодих плодових тіл: Положення краю: загнутий усередину. - Контур краю шапинки
- Контур краю шапинки: хвилястий.
- Діаметр шапинки
- Діаметр шапинки становить 30–60 mm.
- Центр шапинки
- Центр шапинки: з виразним горбком (тупий горбок, іноді).
Центр шапинки: з виразним горбком. - Часткове покривало
- у молодих плодових тіл: Часткове покривало: наявний (від краю шапинки до ніжки, білувата, павутиноподібна).
Низ шапинки
- Тип гіменофора
- Тип гіменофора: пластинки.
Пластинки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (пластинки).
Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки). - Профіль гіменофора біля ніжки
- Профіль гіменофора біля ніжки: виїмчастий біля ніжки (пластинки).
- Низхідність гіменофору по ніжці
- Низхідність гіменофору по ніжці: низхідний зубцем (пластинки).
- Природний колір поверхні пластинки
- Природний колір поверхні пластинки: білувате.
Природний колір поверхні пластинки: сірий.
у зрілих плодових тіл: Природний колір поверхні пластинки: жовтуватий.
Природний колір поверхні пластинки: білувате.
Природний колір поверхні пластинки: кремовий. - Відстань між пластинками
- Відстань між пластинками: помірно густі.
Відстань між пластинками: близько розташовані. - Висота пластинок
- Висота пластинок: 2–4 mm.
- Наявність коротких пластинок
- Наявність коротких пластинок: наявний.
- Кількість рядів довжини пластиночок
- Кількість рядів довжини пластиночок: 2–3.
Ніжка та основа
- Форма ніжки
- Форма ніжки: циліндричний.
- Колір ніжки
- Колір ніжки: білувате або сіро-коричневий.
Колір ніжки: білий або білувате.
Колір ніжки: білий. - Покрив поверхні ніжки
- Покрив поверхні ніжки: Повстиста і волокниста.
у верхній частині ніжки: Покрив поверхні ніжки: пластівчаста або луската. - Внутрішня будова ніжки
- Внутрішня будова ніжки: суцільний.
- Довжина ніжки
- Довжина ніжки: 30–80 mm.
- Діаметр ніжки
- Діаметр ніжки: 5–15 mm.
Кільце
- Наявність кільця
- Наявність кільця: наявний.
Наявність кільця: наявний.
Наявність кільця: наявний. - Будова матеріалу кільця
- Будова матеріалу кільця: ватоподібний.
Будова матеріалу кільця: ватоподібний.
Будова матеріалу кільця: ватоподібний. - Положення кільця
- Положення кільця: у верхній частині ніжки.
Положення кільця: у верхній частині ніжки. - Колір кільця
- Колір кільця: білувате.
Колір кільця: білий.
М'якуш
- Колір м’якуша
- Колір м’якуша: білувате.
Колір м’якуша: білий або кремовий. - Щільність м’якуша
- Щільність м’якуша: щільний.
- Структура м’якуша
- Структура м’якуша: волокнистий (м’якуш ніжки).
- Запах м’якуша
- Запах м’якуша: борошнистий (усе плодове тіло).
Запах м’якуша: приємний (м’якуш). - Товщина м'якоті шапинки
- Товщина м'якоті шапинки: 2–3 mm.
- Смакові нотки
- Смакові нотки: борошнистий.
Де і коли росте
- Оселище
- Оселище: ліс невказаного типу.
Оселище: хвойний ліс або мішаний ліс.
Оселище: листяний ліс, мішаний ліс, заплавний ліс, узлісся, чагарники, рудеральне або міське оселище, лука або фруктовий сад. - Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: групами.
Характер росту плодових тіл: поодинці або розсіяні групи.
Характер росту плодових тіл: групами, розсіяні групи або колами. - Частота трапляння
- Період плодоношення
- Плодові тіла з’являються з жовтня до грудня (період спостереження, роки спостережень: 2006, 2008, 2009, 2011, 2012, 2014, 2015, 2016, 2020, 2023, місяці спостережень: 10, 11, 12).
- Територія поширення
- Potwierdzono występowanie w Polsce.
Їстівність і кулінарія
- Їстівність
- Їстівний
- Необхідна обробка
- Потребує обробки
Право
- Охорона
- Вид не внесено до польського переліку охоронюваних видів грибів.
- Торгівля
- Вид не внесено до польського переліку грибів, дозволених до обігу.
FAQ
З якими деревами пов'язане зростання рядовки оперезаної?
Вид є суворим облігатним мікоризоутворювачем виключно з вербами (Salix spp.), включаючи як деревоподібні види на заплавах, так і низькорослі чагарникові верби на пісках.
У який період року утворюються плодові тіла?
Сезон плодоношення триває з кінця літа до пізньої осені, переважно з кінця серпня до кінця листопада, іноді до настання перших стійких приморозків.
Яка ключова морфологічна ознака відрізняє цей вид від інших сірих рядовок?
Головною відмінністю є стійке волокнисто-повстяне кільце у верхній частині ніжки, яке залишається після розриву захисного часткового покривала.
Чи є рядовка оперезана їстівним грибом?
Так, цей гриб вважається їстівним, проте низької споживчої цінності через тонком'ясистість шапок, специфічний борошняний присмак і загальну рідкісність.
Якої термічної обробки потребує цей гриб?
Як і більшість рядовок, цей вид потребує обов'язкового попереднього відварювання зі зливанням відвару для запобігання можливим розладам травлення.
Із якими небезпечними грибами можна сплутати цей вид?
Його можна сплутати з отруйною рядовкою тигровою (Tricholoma pardinum), проте в останньої повністю відсутнє кільце на ніжці й вона не прив'язана до верб.
Який запах та смак має сира м'якоть гриба?
М'якоть має виразний, сильний запах свіжого сирого борошна або розтертого зерна та невиразний борошняний, злегка терпкий смак.
У яких біотопах найчастіше виявляють цей вид?
Він трапляється у заплавних верболозах, прибережних чагарниках річок і озер, вологих низинах, піщаних дюнах та на рекультивованих ділянках кар'єрів.
Який природоохоронний статус має рядовка оперезана в Європі?
У низці європейських країн (зокрема в Польщі, Німеччині, Нідерландах) вид занесений до Червоних списків як рідкісний або вразливий через зникнення вологих вербових біотопів.
Як використовують цей гриб в екологічних дослідженнях?
Його застосовують як вид-біоіндикатор для оцінки екологічної цінності та збереженості природних заплавних вербових лісів і водно-болотних комплексів.
Любитель
Назви та історія
- Чинна національна назва
- Gąska wierzbowa
- Чинна таксономічна назва
- Tricholoma cingulatum
- Інші назви
- gąska obuta
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте відбиток.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: білий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: еліпсоїдний. Форма спори: циліндричний. Форма спори: еліпсоїдний (широкий). Форма спори: еліпсоїдний. Форма спори: еліпсоїдний (видовжений).
- Поверхня спори
- Поверхня спори: гладенький. Поверхня спори: гладенький.
- Розміри спори
- Довжина 4–7,2 µm, ширина 2,5–4,2 µm.
- Розміри спори
- Довжина 5,2 µm, ширина 3,1 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Екологія та поширення
- Мікоризні партнери
- Загальний зв’язок виду: Мікоризні партнери: Salix repens (загальний перелік партнерів).
- Тип живлення
- Тип живлення: ектомікоризний.
Некулінарне застосування
Практичне некулінарне застосування рядовки оперезаної сконцентроване у сфері природоохоронної біоіндикації, екологічного моніторингу та біотехнології відновлення порушених ландшафтів. Головною сучасною сферою використання виду є екологічна оцінка стабільності заплавних біотопів: мікологи та природоохоронні організації застосовують наявність міцелію й плодових тіл цього гриба як біоіндикатор збереженості природних водно-болотних угідь і відсутності критичного дренажу або хімічного забруднення ґрунтових вод.
У практиці рекультивації земель та фітомеліорації міцеліальні інокуляти рядовки оперезаної застосовують у проєктах штучного озеленення й укріплення берегів. При висаджуванні саджанців верби на деградованих ґрунтах, піщаних кар'єрах, золошлакових відвалах та зонах річкової ерозії мікоризація коріння цим видом гриба використовується для суттєвого підвищення приживлюваності вербових насаджень і прискорення стабілізації ґрунтового покриву.
Крім того, висушені зразки плодових тіл та чисті міцеліальні культури цього вузькоспеціалізованого симбіонта використовуються в освітніх гербаріях університетів, ботанічних колекціях і мікологічних банках штамів для збереження генетичного різноманіття рідкісних ектомікоризних грибів Європи.
Історія та культура
Рядовка оперезана має цікаву історію в розвитку європейської наукової та аматорської мікології дев'ятнадцятого століття. Вперше вид був науково описаний у 1830 році як Agaricus cingulatus (Almfelt ex Fr.), а пізніше Ернст Якобаш перевів його до роду Tricholoma. Гриб тривалий час був предметом ботанічних дискусій щодо його родової належності через наявність волокнистого кільця на ніжці, нетипового для роду Tricholoma.
В європейських мікологічних колах і краєзнавчих спільнотах вид набув символічного статусу маркерного мешканця вербових тугаїв і заплавних лісів. Через свою тісну прихильність до верби цей гриб у традиційній народній номенклатурі німецькомовних та західнослов'янських регіонів часто отримував назви на зразок «вербовий лицар» або «вербова рядовка».
У сучасній європейській екологічній культурі вид має важливе культурно-охоронне значення як природна спадщина незайманих річкових заплав. Гриб внесений до Червоних книг і природоохоронних списків у Німеччині, Нідерландах, Польщі, Великій Британії та інших країнах. Його виявлення часто стає приводом для надання вербовим заболоченим ділянкам охоронного статусу місцевих природних пам'яток, об'єднуючи навколо захисту ландшафтів аматорські товариства охорони природи.
Їстівність і безпека
Рядовка оперезана вважається умовно-їстівним грибом низької споживчої категорії. Для безпечного використання гриб вимагає обов'язкової попередньої термічної підготовки у вигляді відварювання протягом щонайменше п'ятнадцяти-двадцяти хвилин із обов'язковим видаленням первинного відвару. Споживання в сирому або недовареному вигляді становить ризик виникнення шлунково-кишкових розладів і нудоти.
Специфічним фактором безпеки є висока ймовірність помилки при збиранні сірих рядовок через їхню виражену морфологічну схожість, тому споживання можливе лише за абсолютно точного визначення виду з урахуванням наявності кільця та мікоризного зв'язку з вербою.
М'якоть має виражений борошняний або трав'янисто-зерновий запах і нейтральний чи злегка терпкий присмак, який не зникає повністю навіть після варіння. Через тонку м'якоть шапки гриб не становить великої поживної цінності. У більшості країн світу він практично не користується попитом серед любителів дикорослих грибів і збирається вкрай рідко, лишаючись об'єктом інтересу переважно вузького кола грибників-ентузіастів у країнах Центральної та Східної Європи, де традиція вживання сірих рядовок є загальнопоширеною.
Оселище та зростання
Рядовка оперезана трапляється в помірній і бореальній зонах Європи, Північної Азії та Північної Америки. Вона має специфічний, розірваний ареал, що безпосередньо обумовлено поширенням її симбіотичних партнерів. Гриб тяжіє до вологих, заболочених і низинних екосистем, зокрема прируслових заплавних лісів, узбереж озер, меліоративних канав, вологих торфовищ, вологих лук, а також піщаних дюн і кар'єрів з ґрунтовим зволоженням.
Вид є суворим облігатним симбіотрофом, що утворює ектомікоризу виключно з різними видами верб (Salix). Він зв'язаний як із деревоподібними вербами (верба біла, верба ламка), так і з кущовими заплавними видами (верба попеляста, верба вушката, верба пурпурова), а також із низькорослими повзучими формами (верба повзуча) на піщаних ґрунтах приморських дюн. Гриб віддає перевагу вологим піщаним, супіщаним або торф'янистим субстратам із достатнім рівнем аерації.
Сезон появи плодових тіл триває з кінця літа до пізньої осені. Масовий розвиток гриба фіксується від кінця серпня чи вересня до листопада, причому в умовах м'якої осені поодинокі екземпляри знаходять до настання стійких грудневих заморозків. У південних і приморських регіонах плодоношення зміщується ближче до листопада, тоді як у північних районах закінчується наприкінці жовтня.
Джерела
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
Дослідник
Їстівність і кулінарія
Дані джерел: їстівність, споживання та використання
- Їстівність
- Їстівний — джерело визначення
ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii. · Кулінарне використання: В атласах зазвичай позначається як їстівна; поточне групове застереження збережено в Досліднику.
- Необхідна обробка
- Потребує обробки
FAQ gatunku: obróbka termiczna · literal_statements/0 і/1: вимога термічної обробки у FAQ. Це запис редакційного змісту, не результат токсикологічного експерименту.
Наукові назви та таксономія
- Чинна наукова назва
Tricholoma cingulatum
- Zakres ujęcia taksonomicznego
Tricholoma cingulatum w zakresie identyfikacji przedstawionych w źródłach. Zaakceptowany gatunek GBIF 5241744, Index Fungorum 173032. Materiał z Indii i Chin zachowuje własne pochodzenie i metody; atlasom, fotografiom i dawnym polskim zapisom nie przypisano niezależnej identyfikacji DNA.
[29] [32]
Екологія та поширення
- Частота трапляння
- Нідерланди: Частота трапляння: звичайний. [17]
Лабораторна діагностика
Структуровані дані
Базидії
Гіменіальні цистиди
Інші лабораторні ознаки
- Довжина
- Довжина: 35–150 µm. [8]
- Товщина стінки
- Товщина стінки: 1 µm (наближене значення). [8]
Товщина стінки: 0,5–1 µm (наближене значення). [8] - Товщина стінки — якісна оцінка
- Товщина стінки — якісна оцінка: тонкостінний. [33]
Товщина стінки — якісна оцінка: тонкостінний. [8]
Товщина стінки — якісна оцінка: товстостінний (незначно). [8] - Будова субгіменію
- Будова субгіменію: гіфальна. [8]
Шкірка шапинки
- Оптичний вигляд гіф шкірки шапинки
- Оптичний вигляд гіф шкірки шапинки: гіаліновий. [8]
- Розташування гіф шкірки шапинки
- Розташування гіф шкірки шапинки: радіальний. [8]
Розташування гіф шкірки шапинки: переплетені. [8] - Довжина елементів шкірки шапинки
- Довжина елементів шкірки шапинки: 50–180 µm. [33]
- Ширина елементів шкірки шапинки
- Ширина елементів шкірки шапинки: 4–10 µm. [8]
Ширина елементів шкірки шапинки: 4–8 µm. [33]
Реакції з реактивами
Спори
- Середнє відношення довжини спори до її ширини
- Середнє відношення довжини спори до її ширини: 1,7 (стандартне відхилення: 0,15, середнє значення). [8] [7]
- Наявність виросту рубчика базидіоспори
- Наявність виросту рубчика базидіоспори: наявний (відносно великий). [8]
- Колір спор під мікроскопом
- Колір спор під мікроскопом: гіаліновий. [5]
Колір спор під мікроскопом: гіаліновий. [8] - Довжина спори
- Довжина спори: 4,5–6 µm. [5]
Довжина спори: 5,5–7,2 µm. [33]
Довжина спори: 4–6,5 µm. [8]
Довжина спори: 5,2 µm (середнє значення). [8] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 1,4–2. [8]
Відношення довжини спори до її ширини: 1,25–1,38. [33] - Форма спори
- Форма спори: еліпсоїдний. [5]
Форма спори: циліндричний. [5]
Форма спори: еліпсоїдний (широкий). [33]
Форма спори: еліпсоїдний. [8]
Форма спори: еліпсоїдний (видовжений). [8] - Товщина стінки спори
- Товщина стінки спори: тонкостінний. [8]
Трама гіменофора
Матеріал і методи досліджень
Мікроскопічні дані — джерело та обмеження
Матеріал: Вибірка [61/3/2]: 61 спор із 3 плодових тіл та 2 колекцій. Сукупність вимірювань не ототожнювалася з повним переліком зразків, досліджених у публікації.
Обсяг ознайомлення: Фрагменти джерел.
Опрацьовано фрагмент джерела; повний текст і методи не були перевірені.
Обмеження: Середнє значення та відхилення вибірки не є межами окремого Q.
- Результати, наведені в джерелах — Кількість спор на базидії
- Liczba zarodników na jednej podstawce wynosi 4. [33] [8]
- Результати, наведені в джерелах — Ширина гіф трами
- Szerokość strzępek tramy może wynosić od 4 do 10 mikrometrów. [33]
Szerokość strzępek tramy może wynosić od 4 do 7 mikrometrów. [8] - Результати, наведені в джерелах — Довжина спори
- 4,5–6 µm [5]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia długość zarodnika w badanym materiale wynosi 5,2 mikrometra. [8]
4–6,5 µm [8]
5,5–7,2 µm [33] - Результати, наведені в джерелах — Ширина спори
- 2,5–3,5 µm [5]
2,5–4 µm [8]
Materiał badania: Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów. Średnia szerokość zarodnika w badanym materiale wynosi 3,1 mikrometra. [8]
3–4,2 µm [33]
Metody i zapisy źródłowe — Indie, Drass, Bhimbat, Kargil, Ladakh — TMKVYPS21-39 (19.08.2021) i 21-43 (20.08.2021). Źródło podaje n = 20 zarodników bez rozstrzygnięcia podziału próby między kolekcje.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Ręczne skrawki; mikroskop CH20i, rysunki camera lucida przy powiększeniu 2000×, fotomikrografie Olympus CX33. Odczynniki należą do metody, nie warunków cech biologicznych. Barwienie: Congo red 1%.
Wygląd optyczny podstawki — zapis źródłowy: „Druk30/PDF2:hyaline.” [33]
Długość sterygmy podstawki — zapis źródłowy: „Druk30/PDF2:sterigmata2–3µm.” [33]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Druk30/PDF2:4-spored; jeden bezwarunkowy zakresmin–max.” [33]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Druk30/PDF2:Basidia15–30×8–10µm.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:clavate.” [33]
Kształt podstawki — zapis źródłowy: „Druk30/PDF2:subclavate.” [33]
Typ tramy hymenoforu — zapis źródłowy: „Druk30/PDF2:Lamellartramaregular.” [33]
Wygląd optyczny strzępek tramy — zapis źródłowy: „Druk30/PDF2:colourlesshyphae.” [33]
Klasa ściany strzępek tramy — zapis źródłowy: „Druk30/PDF2:thin-walledhyphae.” [33]
Szerokość strzępek tramy — zapis źródłowy: „Druk30/PDF2:hyphae4–10µm.” [33]
Grubość ściany — ocena jakościowa — zapis źródłowy: „Druk30/PDF2:Basidiathin-walled.” [33]
Długość elementów skórki kapelusza; Szerokość elementów skórki — zapis źródłowy: „Druk30/PDF2:filamentoushyphae50–180×4–8µm.” [33]
Organizacja skórki kapelusza — zapis źródłowy: „Druk30/PDF2:pileipellisiscutis.” [33]
Długość zarodnika — zapis źródłowy: „Druk30/PDF2:5.5–6.2–7.2µm,n20; środkowa liczba zachowana w oryginale bez arbitralnego oznaczenia statystyki.” [33]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Druk30/PDF2:Q1.25–1.31–1.38; wartości krańcowe bez wyliczenia własnegoQ.” [33]
Kształt zarodnika — zapis źródłowy: „Druk30/PDF2:broadlyellipsoid.” [33]
Szerokość zarodnika — zapis źródłowy: „Druk30/PDF2:3.0–3.5–4.2µm,n20.” [33]
Metody i zapisy źródłowe — Chiny — źródłowa próba [61/3/2]: 61 bazydiospor z 3 owocników z 2 kolekcji. Ryc. 93 przedstawia HKAS106635; nie przypisuje całej próby tylko temu okazowi. Wykaz badanego materiału zawiera także inne zbiory; nie utożsamiono ich z mianownikiem pomiarów.
Wygląd optyczny podstawki — zapis źródłowy: „Section74:hyaline.” [8]
Wygląd optyczny strzępek skórki — zapis źródłowy: „Section74:colorlesshyphae.” [8]
Układ strzępek skórki — zapis źródłowy: „Section74:radialtointerwovenhyphae.” [8]
Długość sterygmy podstawki — zapis źródłowy: „Section74:sterigmata4–6µm.” [8]
Liczba zarodników na jednej podstawce — zapis źródłowy: „Section74:4-spored; bezwarunkowemin–max.” [8]
Obecność wyrostka wnęki bazydiospory; Długość; Kształt; Grubość ściany; Grubość ściany — ocena jakościowa; Szerokość; Organizacja skórki kapelusza; Budowa subhymenium — zapis źródłowy: „Section74:Lamellartrama” [8]
Długość podstawki; Szerokość podstawki — zapis źródłowy: „Section74:basidia20–30×5–7µm.” [8]
Kształt podstawki — zapis źródłowy: „Section74:clavate.” [8]
Stopień zróżnicowania cystyd — zapis źródłowy: „Section74:Cheilocystidiapoorlydifferentiated.” [8]
Typ tramy hymenoforu — zapis źródłowy: „Section74:lamellartramaregular.” [8]
Szerokość strzępek tramy — zapis źródłowy: „Section74:filamentoushyphae4–7µm.” [8]
Szerokość — zapis źródłowy: „Section74:subhymeniumcomposedof2–4µmwidefilamentoushyphae.” [8]
Szerokość elementów skórki — zapis źródłowy: „Section74:hyphae4–10µm.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:yellowbrown.” [8]
Barwa strzępek skórki kapelusza — zapis źródłowy: „Section74:brownish.” [8]
Obecność pleurocystyd — zapis źródłowy: „Section74:pleurocystidiaabsent.” [8]
Barwa zarodnika w mikroskopie — zapis źródłowy: „Section74:colorless,hyaline.” [8]
Długość zarodnika — zapis źródłowy: „Section74:(4–)4.5–6(–6.5)µm; pełne krańce, co najmniej90%w4.5–6.” [8]
Długość zarodnika — zapis źródłowy: „Section74:meanlength5.2µm.” [8]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Section74:Q1.4–2.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:ellipsoidtoelongate.” [8]
Kształt zarodnika — zapis źródłowy: „Section74:elongate.” [8]
Powierzchnia zarodnika — zapis źródłowy: „Section74:smooth.” [8]
Grubość ściany zarodnika — zapis źródłowy: „Section74:thin-walled.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:(2.5–)3–4µm;pełnekrańce.” [8]
Szerokość zarodnika — zapis źródłowy: „Section74:meanwidth3.1µm.” [8]
Metody i zapisy źródłowe — ČMS — atlasowy opis zarodników; bez podanej próby i protokołu, pochodzenie materiału niepodane.
Barwa zarodnika w mikroskopie — zapis źródłowy: „Popis:průsvitné.” [5]
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „Popis:4,5–6×2,5–3,5µm.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:elipsoidní.” [5]
Kształt zarodnika — zapis źródłowy: „Popis:částečněválcovité; źródłowa część zbioru, nie wszystkie zarodniki.” [5]
Powierzchnia zarodnika — zapis źródłowy: „Popis:hladké.” [5]
Zakres opisów i ocen
Połączenie blaszek: ČMS opisuje blaszki jako wycięte przy trzonie, z krótkim ząbkiem. Mehmood i in. (2022) nazywają je wolnymi. Drugi zapis dotyczy indyjskich kolekcji TMKVYPS21-39 i 21-43; nie zastąpiono nim opisu europejskiego ani nie scalono obu stanów w bezwarunkowy wariant.
Oceny kulinarne: ČMS podaje, że atlasy określają gatunek jako jadalny, ale odradza spożywanie grzybów z okręgu gąski ziemistej. To rekomendacja dotycząca grupy, a nie przedstawiony tam test toksyczności gąski wierzbowej. W odczytanym zbiorze źródeł nie znaleziono bezpośredniego eksperymentu tego gatunku potwierdzającego mechanizm termolabilnych substancji drażniących i neutralizację przez odlanie wody. To zakres przeprowadzonego przeglądu, nie dowód nieistnienia takich badań.
Wierzby i sąsiedztwo drzew: Źródło chińskie wyraźnie odróżnia europejskie powiązanie z wierzbami od znalezisk w chińskich lasach Fagaceae i Pinaceae. Skład drzewostanu nie dowodzi mikoryzy z każdym wymienionym drzewem. Tak samo wpisy o brzozach i topolach w grzyby.pl oraz artykule indyjskim zachowano jako obserwacje siedliskowe; nie dopisano z nich nowych potwierdzonych partnerów korzeniowych.
Матеріал і методи
Індія: Mehmood et al. (2022) описали дві колекції з Бхімбата в Драссі, 19 та 20 серпня 2021 р., TMKVYPS21-39 та 21–43. Вони вказали n = 20 спор без однозначного розподілу вибірки між колекціями. Зрізи досліджували в 5% KOH та 1% конго червоному. Тричленні записи вимірів і Q збережено за джерелом; через відсутність визначення середнього статистичного показника його не позначали довільно як середнє. Послідовність OM977115 з 21–39 виявила 100% подібності до MW628104. У тексті методи вказують на MEGA-X, а підпис до рисунка — MEGA6.0; розбіжність залишається на рівні дослідження.
Китай: Cui et al. (2026), секція 74: вибірка [61/3/2] означає 61 спор із 3 плодових тіл і 2 колекцій. Щонайменше 90% вимірювань довжини припадає на 4,5–6 мкм, а повні крайні значення становлять 4–6,5 мкм; ширина має повні крайні значення 2,5–4 мкм. Qm 1,7 ± 0,15 є середнім зі стандартним відхиленням вибірки. Препарати монтували в 5% KOH, конго червоний використовували за потреби, а амілоїдність перевіряли реактивом Мельцера. Для інших структур вказано також фазовий контраст 1000×. СЕМ не приписували цьому виду за замовчуванням. Рис. 93 походить з HKAS106635 і сам по собі не ідентифікує всю вибірку.
Північна Європа: Heilmann-Clausen et al. (2017) зазначають у загальній методиці щонайменше 20 випадково обраних спор на колекцію та препарати в 2% KOH або 5–10% NH3. Цьому виду не приписували довільно n = 20 або обидва середовища одночасно. Таблиця 1 пов'язує названі колекції зі Словаччини, Данії та Нідерландів із номерами зразків і послідовностей; самі роки та коди колекцій не визначають місяців плодоношення.
Зчитані місцезнаходження
Польща: Повна картка grzyby.pl містить 15 датованих записів GRej, включно з повторними підтвердженнями місцезнаходжень. Це локальні спостереження від 2006 до 2023 рр., а не оцінка чисельності по всій Польщі. Окремі дати охоплюють жовтень, листопад та 6 грудня 2020 р. біля Дембоґури. Wojewoda (2003), запис T. cingulatum, описує збір із Батовицького цвинтаря в Кракові за 1998 р. і вказує жовтень; під T. ramentaceum він наводить історичний запис із Букової пущі (Puszcza Bukowa), зі Щецина та околиць. Дати публікації не переносилися на дати збору. Воєводства та точні місцезнаходження без відповідного спільного ідентифікатора залишаються у збереженому записі.
Закордонний ареал: В аналізі за 2017 р. є збори MC03-252 з Гавешової в Словаччині, данський неотип MC96-134, інший данський збір MC96-170 з Борума та нідерландський MEN95210 з Boekweitveentje в Дренте. Китайський матеріал охоплює Сичуань (Кандін/Гонггашань, 2700 м; Пінву, 2500 м) та Юньнань (Шангрі-Ла/Вонгшуй, 3400 м). Індійська стаття також перелічує європейські країни на основі давніших праць; процитовані книги не зчитувалися автоматично повністю, і цей список не визнавався актуальним повним ареалом поширення.
Доказ мікоризи з вербою
Досліджений корінь: Leake et al. (2004) описали ектомікоризні кінчики коренів верби повзучої Salix repens в Newborough Warren. Досліджували три групи зразків коренів; автори спостерігали мікоризні чохлики та тяжі ризоморфів, а зразки мали профіль ITS-RFLP типу I, що відповідав досліджуваному симбіонту Monotropa. Це доказ, що виходить за межі простого сусідства дерев. Таблиця 5 наводить для цих трьох зразків Salix «nd» для mtLSU та регіону ITS, тому це не означає трьох незалежно секвенованих зразків. Вид спільного типу визначали на основі репрезентативних послідовностей і порівняння з плодовими тілами.
Коло партнерів: Цей прямий доказ стосується Salix repens. Запис щодо Salix caprea в Millers Dale описує Monotropa, що росте під вербою, і не містить окремого аналізу коренів цієї верби. У даних зафіксовано доступний рід Salix; точна назва верби повзучої залишається на рівні дослідження. Цим методом не було підтверджено всі види верб чи інші дерева, згадані в описах оселищ.
Скринінгове дослідження екстрактів
Матеріал 46/07: Otto (2017), додаток A3, зазначає матеріал T. cingulatum 46/07, позначений «fr». Для метанольного та етилацетатного екстрактів таблиця показує відсутність інгібування у трьох тестах, позначених як SEPTTR, PHYTIN та CLADCU. У колонці BOTRCI вказано «n.t.» — не досліджувалося; цей запис не замінювали на негативний результат. Це якісні результати конкретного матеріалу та тестів, без висновків щодо практичного чи лікувального застосування виду.
Межі даних: З прочитаного витягу не вдалося встановити концентрації, кількість повторів, числовий кінцевий показник, а також номер гербарного зразка та місце збору. Не розшифровано автоматично всі коди тестових організмів. Пряма адреса репозиторію повернула HTML-сторінку замість PDF; збережене прочитання таблиці не є заявою про прочитання всієї дисертації. Результати не переносилися на приготовані плодові тіла, безпеку харчових продуктів або клінічну ефективність.
Склад матеріалу з Каргілу — обсяг дослідження
Матеріал і повторності: Mayirnao та ін. (2025) зібрали зрілі плодові тіла в Драсі в районі Каргіл у вересні 2022 р., на висоті 3276 м над рівнем моря. Було розділено профіль метаболітів ГХ–МС, визначення сухої маси та молярні співвідношення. Три повторності визначень не визначають кількості незалежних плодових тіл. Щодо детальних протоколів та молекулярної ідентифікації автори відсилають до додатку; додаток не переглядався.
Значення відсотків: Таблиця 1 наводить відсотковий склад профілю метаболітів ГХ–МС. Це не є масовим відсотком компонента в плодовому тілі. Збережено кожен показник колонки T. cingulatum та вихідні SD. Окремо залишаються результати невиявлення: Tyrosine, Glycyl glycine, Homoserine, Ornithine, Dodecanamide, Niacin, Phosphinoline ethanamine, Arabinopyranose, Galactose, Maltose, Mannitol, Arachidic acid, Lignoceric acid, Margaric acid, Linoelaidic acid, Ricinoleic acid, Eicosatrienoic acid, Linoleoylglycerol, Hydroxyandrosterone, Pimelic acid, β-sitosterol, Suberic acid, Tetracosane, Ascorbic acid, Hydroxyglutaric acid, Salicylic acid. Невиявлення певним методом не означає абсолютної відсутності речовини. Гідроксиглутарова кислота зустрічається в таблиці у двох різних рядках; відмінний кількісний запис і невиявлення не об'єднувалися.
Антиоксидантні тести: У розділі 3.10 автори навели для T. cingulatum IC50 = 9,03 мг/мл у тесті зв'язування пероксиду водню та 5,52 мг/мл у тесті відновлення фериціаніду калію. Це результати тестів, а не підтвердження лікування, суплементації чи безпечності споживання. Основний текст не розкриває всіх деталей протоколу тестів; вони не замінювалися тестом DPPH або іншою кінцевою точкою. В анотації було виділено відновлювальну активність V. bombycina, незважаючи на нижче значення, наведене для T. cingulatum у розділі результатів.
Верифікація трапляння — межі та обмеження
Матеріал: Dokładny zapis źródłowy dla BG
Обсяг перегляду: Фрагменти джерел.
Переглянуто фрагмент джерела; повний текст і методи не перевірялися.
Дата перегляду: 10.11.2026.
Обмеження: Обсяг випливає з наведеного джерела; без поширення на інші території чи періоди.
Охоплення опрацювання
Перед завершенням запис потребує доповнення або перевірки.
- Нові джерела вимагають обліку інформації, виявленої під час огляду.
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Підстава відомостей про охорону
Вид не зазначений у додатках до розпорядження про видову охорону грибів (Dz.U.2014/1408).
Підстава відомостей про торгівлю
Вид не зазначений у переліку допуску до обігу або виробництва грибних продуктів (Dz.U.2026/258,załącznik1); це не є класифікацією їстівності.
Аналітичні результати
Окремі вихідні аналітичні результати
- Ізолейцин — частка в профілі GC–MS
- Результат визначення становить 0,59 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,14 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Лейцин — частка в профілі GC–MS
- Результат визначення становить 0,44 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,08 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Лізин — частка в профілі GC–MS
- Результат визначення становить 0,65 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,04 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Фенілаланін — частка в профілі GC–MS
- Результат визначення становить 0,58 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,15 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Треонін — частка в профілі GC–MS
- Результат визначення становить 2,22 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,45 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Валін — частка в профілі GC–MS
- Результат визначення становить 1,12 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,09 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Аланін — частка в профілі GC–MS
- Результат визначення становить 2,64 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,59 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Аспарагін — частка в профілі GC–MS
- Результат визначення становить 0,14 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,01 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Аспарагінова кислота — частка в профілі GC–MS
- Результат визначення становить 0,26 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,07 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Глутамінова кислота — частка в профілі GC–MS
- Результат визначення становить 0,98 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,35 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гліцин — частка в профілі GC–MS
- Результат визначення становить 2,11 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,78 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Пролін — частка в профілі GC–MS
- Результат визначення становить 0,59 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,28 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Серин — частка в профілі GC–MS
- Результат визначення становить 1,0 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,14 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Ацетиллізин — частка в профілі GC–MS
- Результат визначення становить 0,21 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,03 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Ерготіонеїн — частка в профілі GC–MS
- Результат визначення становить 0,16 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,03 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гліцилпролін — частка в профілі GC–MS
- Результат визначення становить 0,81 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,16 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- 5-оксопролін — частка в профілі GC–MS
- Результат визначення становить 7,95 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,04 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Аденозин — частка в профілі GC–MS
- Результат визначення становить 0,27 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,1 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Етаноламін — частка в профілі GC–MS
- Результат визначення становить 1,36 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,28 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Метиладенозин — частка в профілі GC–MS
- Результат визначення становить 0,19 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,01 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Урацил — частка в профілі GC–MS
- Результат визначення становить 0,59 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,22 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Сечовина — частка в профілі GC–MS
- Результат визначення становить 1,88 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,12 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Уридин — частка в профілі GC–MS
- Результат визначення становить 1,04 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,17 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Дезоксигалактоза — частка в профілі GC–MS
- Результат визначення становить 0,04 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,01 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Еритроза — частка в профілі GC–MS
- Результат визначення становить 0,2 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,05 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Фруктоза — частка в профілі GC–MS
- Результат визначення становить 1,55 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,41 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Фруктопіраноза — частка в профілі GC–MS
- Результат визначення становить 0,42 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,06 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Талоза — частка в профілі GC–MS
- Результат визначення становить 0,86 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,06 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Трегалоза — частка в профілі GC–MS
- Результат визначення становить 18,67 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,69 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Ксилулоза — частка в профілі GC–MS
- Результат визначення становить 0,25 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,08 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- α-маннобіоза — частка в профілі GC–MS
- Результат визначення становить 0,28 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,01 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Дезокситетронова кислота — частка в профілі GC–MS
- Результат визначення становить 0,22 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,04 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Глюконова кислота — частка в профілі GC–MS
- Результат визначення становить 1,55 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,26 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гліцеринова кислота — частка в профілі GC–MS
- Результат визначення становить 0,62 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,23 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гідроксиглутарова кислота — частка в профілі GC–MS
- Результат визначення становить 0,29 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,1 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Рибонова кислота — частка в профілі GC–MS
- Результат визначення становить 0,19 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,06 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Ксилонова кислота — частка в профілі GC–MS
- Результат визначення становить 0,52 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,11 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Еритритол — частка в профілі GC–MS
- Результат визначення становить 1,28 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,37 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Глюцитол — частка в профілі GC–MS
- Результат визначення становить 10,33 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 2,42 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гліцерол — частка в профілі GC–MS
- Результат визначення становить 5,71 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,45 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Мезоеритритол — частка в профілі GC–MS
- Результат визначення становить 0,05 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,03 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Міоінозитол — частка в профілі GC–MS
- Результат визначення становить 1,05 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,2 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Рибітол — частка в профілі GC–MS
- Результат визначення становить 2,36 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,18 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Міристинова кислота — частка в профілі GC–MS
- Результат визначення становить 0,65 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,03 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Пальмітинова кислота — частка в профілі GC–MS
- Результат визначення становить 3,7 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,66 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Стеаринова кислота — частка в профілі GC–MS
- Результат визначення становить 1,8 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,41 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Олеїнова кислота — частка в профілі GC–MS
- Результат визначення становить 6,05 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,5 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Пальмітоелаїдинова кислота — частка в профілі GC–MS
- Результат визначення становить 0,22 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,11 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Моноолеоїлгліцерол — частка в профілі GC–MS
- Результат визначення становить 1,47 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,14 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Монопальмітат гліцеролу — частка в профілі GC–MS
- Результат визначення становить 0,39 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,11 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Лінолева кислота — частка в профілі GC–MS
- Результат визначення становить 5,3 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,08 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Азелаїнова кислота — частка в профілі GC–MS
- Результат визначення становить 1,12 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,34 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Стигмастерол — частка в профілі GC–MS
- Результат визначення становить 0,11 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,0 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Лимонна кислота — частка в профілі GC–MS
- Результат визначення становить 1,77 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,47 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Етилмалонова кислота — частка в профілі GC–MS
- Результат визначення становить 0,29 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,11 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Фумарова кислота — частка в профілі GC–MS
- Результат визначення становить 1,15 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,13 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Гідроксималонова кислота — частка в профілі GC–MS
- Результат визначення становить 0,34 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,04 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Малеїнова кислота — частка в профілі GC–MS
- Результат визначення становить 4,31 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,64 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Метилмалеїнова кислота — частка в профілі GC–MS
- Результат визначення становить 0,07 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,02 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Метилбурштинова кислота — частка в профілі GC–MS
- Результат визначення становить 0,23 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,04 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Піровиноградна кислота — частка в профілі GC–MS
- Результат визначення становить 0,22 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,001 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Щавлева кислота — частка в профілі GC–MS
- Результат визначення становить 0,15 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,06 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Шикімова кислота — частка в профілі GC–MS
- Результат визначення становить 0,37 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,1 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Бурштинова кислота — частка в профілі GC–MS
- Результат визначення становить 1,0 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,17 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Фосфорна кислота — частка в профілі GC–MS
- Результат визначення становить 0,6 % профілю GC–MS. Масова основа не зазначена в джерелі. Невизначеність: 0,1 % профілю GC–MS (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: GC–MS після дериватизації MSTFA; відсоток складу профілю метаболітів згідно з таблицею 1.[36] [37]
- Азот
- Результат визначення становить 12,84 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,35 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: аналізатор CHNS.[36] [37]
- Сірка
- Результат визначення становить 1,02 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,17 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: аналізатор CHNS.[36] [37]
- Фосфор
- Результат визначення становить 0,94 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,03 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: детальний метод для P не був однозначно визначений у прочитаній частині методів.[36] [37]
- Натрій
- Результат визначення становить 22,01 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 3,83 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: полуменева фотометрія.[36] [37]
- Калій
- Результат визначення становить 31,2 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,75 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: полуменева фотометрія.[36] [37]
- Кальцій
- Результат визначення становить 0,68 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,12 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Магній
- Результат визначення становить 0,67 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 0,01 мг/г (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Алюміній
- Результат визначення становить 39,07 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 3,26 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Мідь
- Результат визначення становить 53,95 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 2,4 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Залізо
- Результат визначення становить 223,05 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 38,74 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Нікель
- Результат визначення становить 22,41 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 3,93 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Хром
- Результат визначення становить 30,92 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 2,94 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: ICP–MS.[36] [37]
- Марганець
- Результат визначення становить 55,6 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 5,75 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: ICP–MS.[36] [37]
- Селен
- Результат визначення становить 26,43 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 1,09 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: ICP–MS.[36] [37]
- Молібден
- Результат визначення становить 61,22 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 5,91 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: ICP–MS.[36] [37]
- Цинк
- Результат визначення становить 30,58 мікрограма на грам. Результат відноситься до сухої маси досліджуваного матеріалу. Невизначеність: 4,77 мікрограма на грам (стандартне відхилення). Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: атомно-абсорбційна спектрометрія.[36] [37]
- Молярне співвідношення OA/(Ca+Mg)
- Результат визначення становить 0,4. Метод згідно з джерелом: молярне співвідношення, наведене авторами; OA — щавлева кислота, PA — фітинова кислота.[36] [37]
- Молярне співвідношення PA/Fe
- Результат визначення становить 0,16. Метод згідно з джерелом: молярне співвідношення, наведене авторами; OA — щавлева кислота, PA — фітинова кислота.[36] [37]
- Молярне співвідношення PA/Ca
- Результат визначення становить 0,13. Метод згідно з джерелом: молярне співвідношення, наведене авторами; OA — щавлева кислота, PA — фітинова кислота.[36] [37]
- Молярне співвідношення PA/Zn
- Результат визначення становить 6,33. Метод згідно з джерелом: молярне співвідношення, наведене авторами; OA — щавлева кислота, PA — фітинова кислота.[36] [37]
- Загальний білок
- Результат визначення становить 312 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: метод Бредфорда.[36] [37]
- Загальні феноли — визначення за Фоліном–Чокальтеу
- Результат визначення становить 38,33 мг/г. Результат відноситься до сухої маси досліджуваного матеріалу. Статистика: середня. n = 3 (повтори, вказані в джерелі; біохімічні вимірювання). Метод згідно з джерелом: метод Фоліна–Чокальтеу; калібрант не зазначений однозначно у прочитаній частині методів.[36] [37]
Екологічні дослідження
Додаткові джерела поширення
Болгарія: Assyov (2023) описав місцезнаходження в Боровці в горах Рила: 8 жовтня 2016 р. та 13 листопада 2020 р., зразки SOMF29917 і SOMF30896. Вони росли під Salix caprea та Betula pendula у молодому мішаному хвойному лісі; наявність берези в оселищі не є доказом мікоризи з березою. Два місяці зборів не визначають повного сезону країни. Історичний болгарський запис назви T. ramentaceum від 1955 р. автор визнав невизначеним, без знайденого зразка.
Словаччина: Spravodajca Slovenskej mykologickej spoločnosti 12 (1996), с. 28, наводить збір S. Glejdura під вербами в арборетумі Борова гора в Зволені, 320 м над рівнем моря, 11 жовтня 1995 р. Рік вказує підсумок списку знахідок від 1995 р. Переглянутий запис підтверджує жовтневе спостереження, а не весь словацький сезон. Назва в джерелі зберегла історичний запис авторства.
Велика Британія: Norfolk Fungus Study Group публікує 20 записів з 17 місцезнаходжень у 1988–2025 роках. Датовані записи припадають на жовтень–грудень; Felthorpe Woods має збір від 22 грудня 1988 р. Реєстр охоплює, серед іншого, Whitlingham Marsh, Horsey Warren, Thetford і Holt. Зв'язки з вербою або сосною записані як спостережуване сусідство, без автоматичного підтвердження кореневого партнера. Дані з Норфолка не узагальнювалися на повний сезон усієї Великої Британії.
Нідерланди: Атлас NDFF визначає вид як звичайний на основі верифікованих спостережень 2004–2023 років. Окремо він наводить категорію вразливий із червоного списку 2008; частота трапляння та категорія загрози описують різні питання. Він вказує на бідний на гумус пісок і зв'язок із Salix repens. Графік фенології змодельований за спостереженнями 2000–2021; незчитані числові значення з нього не переписувалися.
Оселище та зростання
Підтверджений ареал поширення
Усі території підтверджені в збережених даних джерел.
| Країна | Регіони та місцезнаходження | Плодоношення | Джерела |
|---|---|---|---|
| Болгарія | У збережених даних не визначено регіонів | X–XI — мінімальний діапазон спостережень |
|
| Китай | Сичуань; Юньнань (Yunnan) | VIII–X — мінімальний діапазон спостережень |
|
| Чехія | Плзенський край; Устецький край | VII–XI |
|
| Данія | У збережених даних не визначено регіонів | Не визначено |
|
| Велика Британія | У збережених даних не визначено регіонів | X–XII — мінімальний діапазон спостережень |
|
| Індія | Ладакх; Драс, Ладакх; Каргіл, Ладакх | VIII — мінімальний діапазон спостережень | |
| Нідерланди | У збережених даних не визначено регіонів | Не визначено |
|
| Польща | Лодзинське воєводство; Малопольське воєводство; Підляське воєводство; Західнопоморське воєводство; Поморське воєводство; Семяновиці-Шльонські; Любуське воєводство | X–XII — мінімальний діапазон спостережень |
|
| Словаччина | У збережених даних не визначено регіонів | X — мінімальний діапазон спостережень |
|
Джерела
- Dz.U. 2014/1408
- Dz.U. 2026/258
- ČMS — odczytano opis gatunkowy, występowanie, oceny i listę obserwacji; nie przeczytano całej cytowanej bibliografii.
- Źródłowo nazwane zakresy badania sprzążek
- ŚredniQ i odchylenie standardowe próby
- Cui i in. 2026 — odczytane metody oraz sekcja74, nie cały artykuł; materiałChiny.
- bulgaria — odczytany zakres dotyczący Tricholoma cingulatum
- ndff — odczytany zakres dotyczący Tricholoma cingulatum
- norfolk — odczytany zakres dotyczący Tricholoma cingulatum
- slovakia — odczytany zakres dotyczący Tricholoma cingulatum
- GBIF exactaccepted5241744, family8787
- Pełna karta i obserwacje odczytane przez Terra w zalogowanym Chrome; zachowany wyciąg, nie surowy HTML.
- Heilmann-Clausen iin. 2017:metody, Table1i dyskusjaT.cingulatum;niecałyartykuł
- IndexFungorum173032:obecnakombinacja 1892, bazionim 1830
- Mehmood i in. 2022, Kavaka58(1): 29–32 — odczytano czterostronicowy artykuł; cechy kolekcji z Indii pozostają w profiluIN.
- Kujawa iGierczyk 2016:odczytanowpisgatunkudruk49/PDF45
- Leake iin. 2004 — ukierunkowanyodczytMethods, Results, Table5iFig1l;rootpartnerSalixrepens, nieSalixcaprea;wyciągniejestsurowymPDF
- Mayirnao i in. 2025 — wyniki składu i testów z materiału Drass, Kargil
- Dokładne źródłowe wyniki kolumny T. cingulatum — Mayirnao 2025
- Otto 2017, AppendixA3, druk181 — ograniczonywyciągweb;nieosiągniętorawPDF
- Wojewoda 2003:wpisT.cingulatumdruk662/PDF664 orazT.ramentaceumdruk668/PDF670;niecałaksiążka