
Jedlý

Nastavte polohu, abyste viděli údaje pro svůj region.


Hřib sametový (Xerocomellus pruinatus) je jedlá rourkatá houba ceněná pro pevnou dužninu a pozdní období plodnosti. Jeho klobouk má tmavohnědou až červenohnědou barvu a mladé plodnice pokrývá charakteristický, matný, ojíněný povlak. Rourky jsou žluté, stářím olivové, po otlačení slabě modrají. Třeň je v horní části žlutý a ve spodní části načervenalý. Roste v listnatých a smíšených lesích, převážně pod buky nebo duby. Je to chutná houba vhodná ke smažení, sušení i nakládání.
Rozpoznávání, stanoviště a nejdůležitější rozdíly.
Houbař
Stavba plodnice
- Typ stavby plodnice
- Typ stavby plodnice: Klobouk, třeň.
Klobouk
- Tvar klobouku
- u mladých plodnic: Tvar klobouku: polokulovitý.
u zralých plodnic: Tvar klobouku: vyklenutý.
u zralých plodnic: Tvar klobouku: plochý. - Pokryv klobouku
- Pokryv klobouku: sametový.
Pokryv klobouku: sametový nebo ojíněný.
Pokryv klobouku: ojíněný.
u mladých plodnic: Pokryv klobouku: holá nebo ojíněný.
Pokryv klobouku: plstnatý.
Pokryv klobouku: sametový a ojíněný. - Vzor praskání povrchu
- u zralých plodnic: Vzor praskání povrchu: rozpraskaná na nepravidelná políčka.
- Barva klobouku
- Barva klobouku: černohnědý.
Barva klobouku: načernalý.
Barva klobouku: hnědý.
Barva klobouku: tmavohnědý.
Barva klobouku: šedohnědý.
Barva klobouku: světle hnědý.
Barva klobouku: okrový.
Barva klobouku: olivově hnědý.
Barva klobouku: červený.
Barva klobouku: červenohnědý.
Barva klobouku: červený (na okraji klobouku).
Barva klobouku: vínový (na okraji klobouku). - Průměr klobouku
- Průměr klobouku je do 120 mm.
Spodní strana klobouku
- Typ hymenoforu
- Typ hymenoforu: rourky.
- Tvar pórů
- Tvar pórů: hranaté.
- Barva pórů po poranění
- Barva pórů po poranění: modrý.
Barva pórů po poranění: modrý.
Barva pórů po poranění: beze změny barvy.
Barva pórů po poranění: Modrozelená. - Barva rourek po poranění
- Barva rourek po poranění: modrý.
Barva rourek po poranění: modrý.
Barva rourek po poranění: beze změny barvy. - Přirozená barva pórů
- Přirozená barva pórů: bledě žlutý.
Přirozená barva pórů: sytě žlutý.
Přirozená barva pórů: žlutý.
u zralých plodnic: Přirozená barva pórů: žlutoolivový.
u zralých plodnic: Přirozená barva pórů: oranžový. - Přirozená barva rourek
- Přirozená barva rourek: bledě žlutý.
Přirozená barva rourek: žlutý.
u zralých plodnic: Přirozená barva rourek: žlutoolivový.
Třeň a báze
- Tvar třeně
- Tvar třeně: válcovitý.
Tvar třeně: válcovitý nebo kyjovitý. - Báze třeně
- u mladých plodnic: Báze třeně: kyjovitý.
Báze třeně: ztlustlá. - Barva třeně
- u mladých plodnic: Barva třeně: žlutý.
u zralých plodnic, v dolní části třeně: Barva třeně: červený nebo červenohnědý.
Barva třeně: bledě žlutý nebo žlutý.
v horní části třeně: Barva třeně: žlutý.
v dolní části třeně: Barva třeně: nahnědlý.
Barva třeně: žlutý a červený.
v horní části třeně: Barva třeně: citronově žlutý. - Pokryv povrchu třeně
- Pokryv povrchu třeně: vločkatá.
Pokryv povrchu třeně: zrnitá.
Pokryv povrchu třeně: ojíněný a vláknitá. - Vzor povrchu třeně
- Vzor povrchu třeně: skvrnitá.
- Barva ornamentace třeně
- Barva ornamentace třeně: červený.
Barva ornamentace třeně: oranžový, žlutozelený, červený nebo červenohnědý.
v dolní části třeně: Barva ornamentace třeně: meruňková nebo červený. - Barva povrchu třeně po poranění
- Barva povrchu třeně po poranění: modrý (povrch třeně).
Barva povrchu třeně po poranění: modrý (povrch třeně).
Barva povrchu třeně po poranění: hnědý (povrch třeně). - Délka třeně
- Délka třeně: 40–100 mm.
- Průměr třeně
- Průměr třeně: 10–25 mm.
Dužnina
- Barva dužniny
- Barva dužniny: žlutý.
Barva dužniny: žlutavý (dužnina klobouku).
Barva dužniny: žlutý (dužnina třeně).
Barva dužniny: bledě žlutý (dužnina klobouku).
Barva dužniny: nahnědlý (dužnina u báze třeně).
Barva dužniny: žlutavý nebo bělavá (dužnina klobouku). - Pevnost dužniny
- Pevnost dužniny: pevný (dužnina klobouku).
Pevnost dužniny: pevný. - Chuť dužniny
- Chuť dužniny: slabý.
- Barva dužniny po poranění
- Barva dužniny po poranění: modrý.
Barva dužniny po poranění: modrý.
Barva dužniny po poranění: Modrozelená (dužnina klobouku).
Barva dužniny po poranění: Modrozelená (dužnina třeně). - Vůně dužniny
- Vůně dužniny: houbový, slabý.
Kde a kdy roste
- Stanoviště
- Stanoviště: listnatý les nebo jehličnatý les.
Stanoviště: listnatý les, smíšený les nebo park.
Stanoviště: smíšený les, park nebo listnatý les. - Substrát
- Substrát: půda.
- Způsob růstu plodnic
- Způsob růstu plodnic: jednotlivě.
Způsob růstu plodnic: srostlé plodnice. - Doba růstu
- Plodnice se objevují od září do listopadu.
- Oblast výskytu
Jedlost a kuchyně
- Jedlost
- Jedlý
- Kulinářské hodnocení
- Chutný
Možná záměna
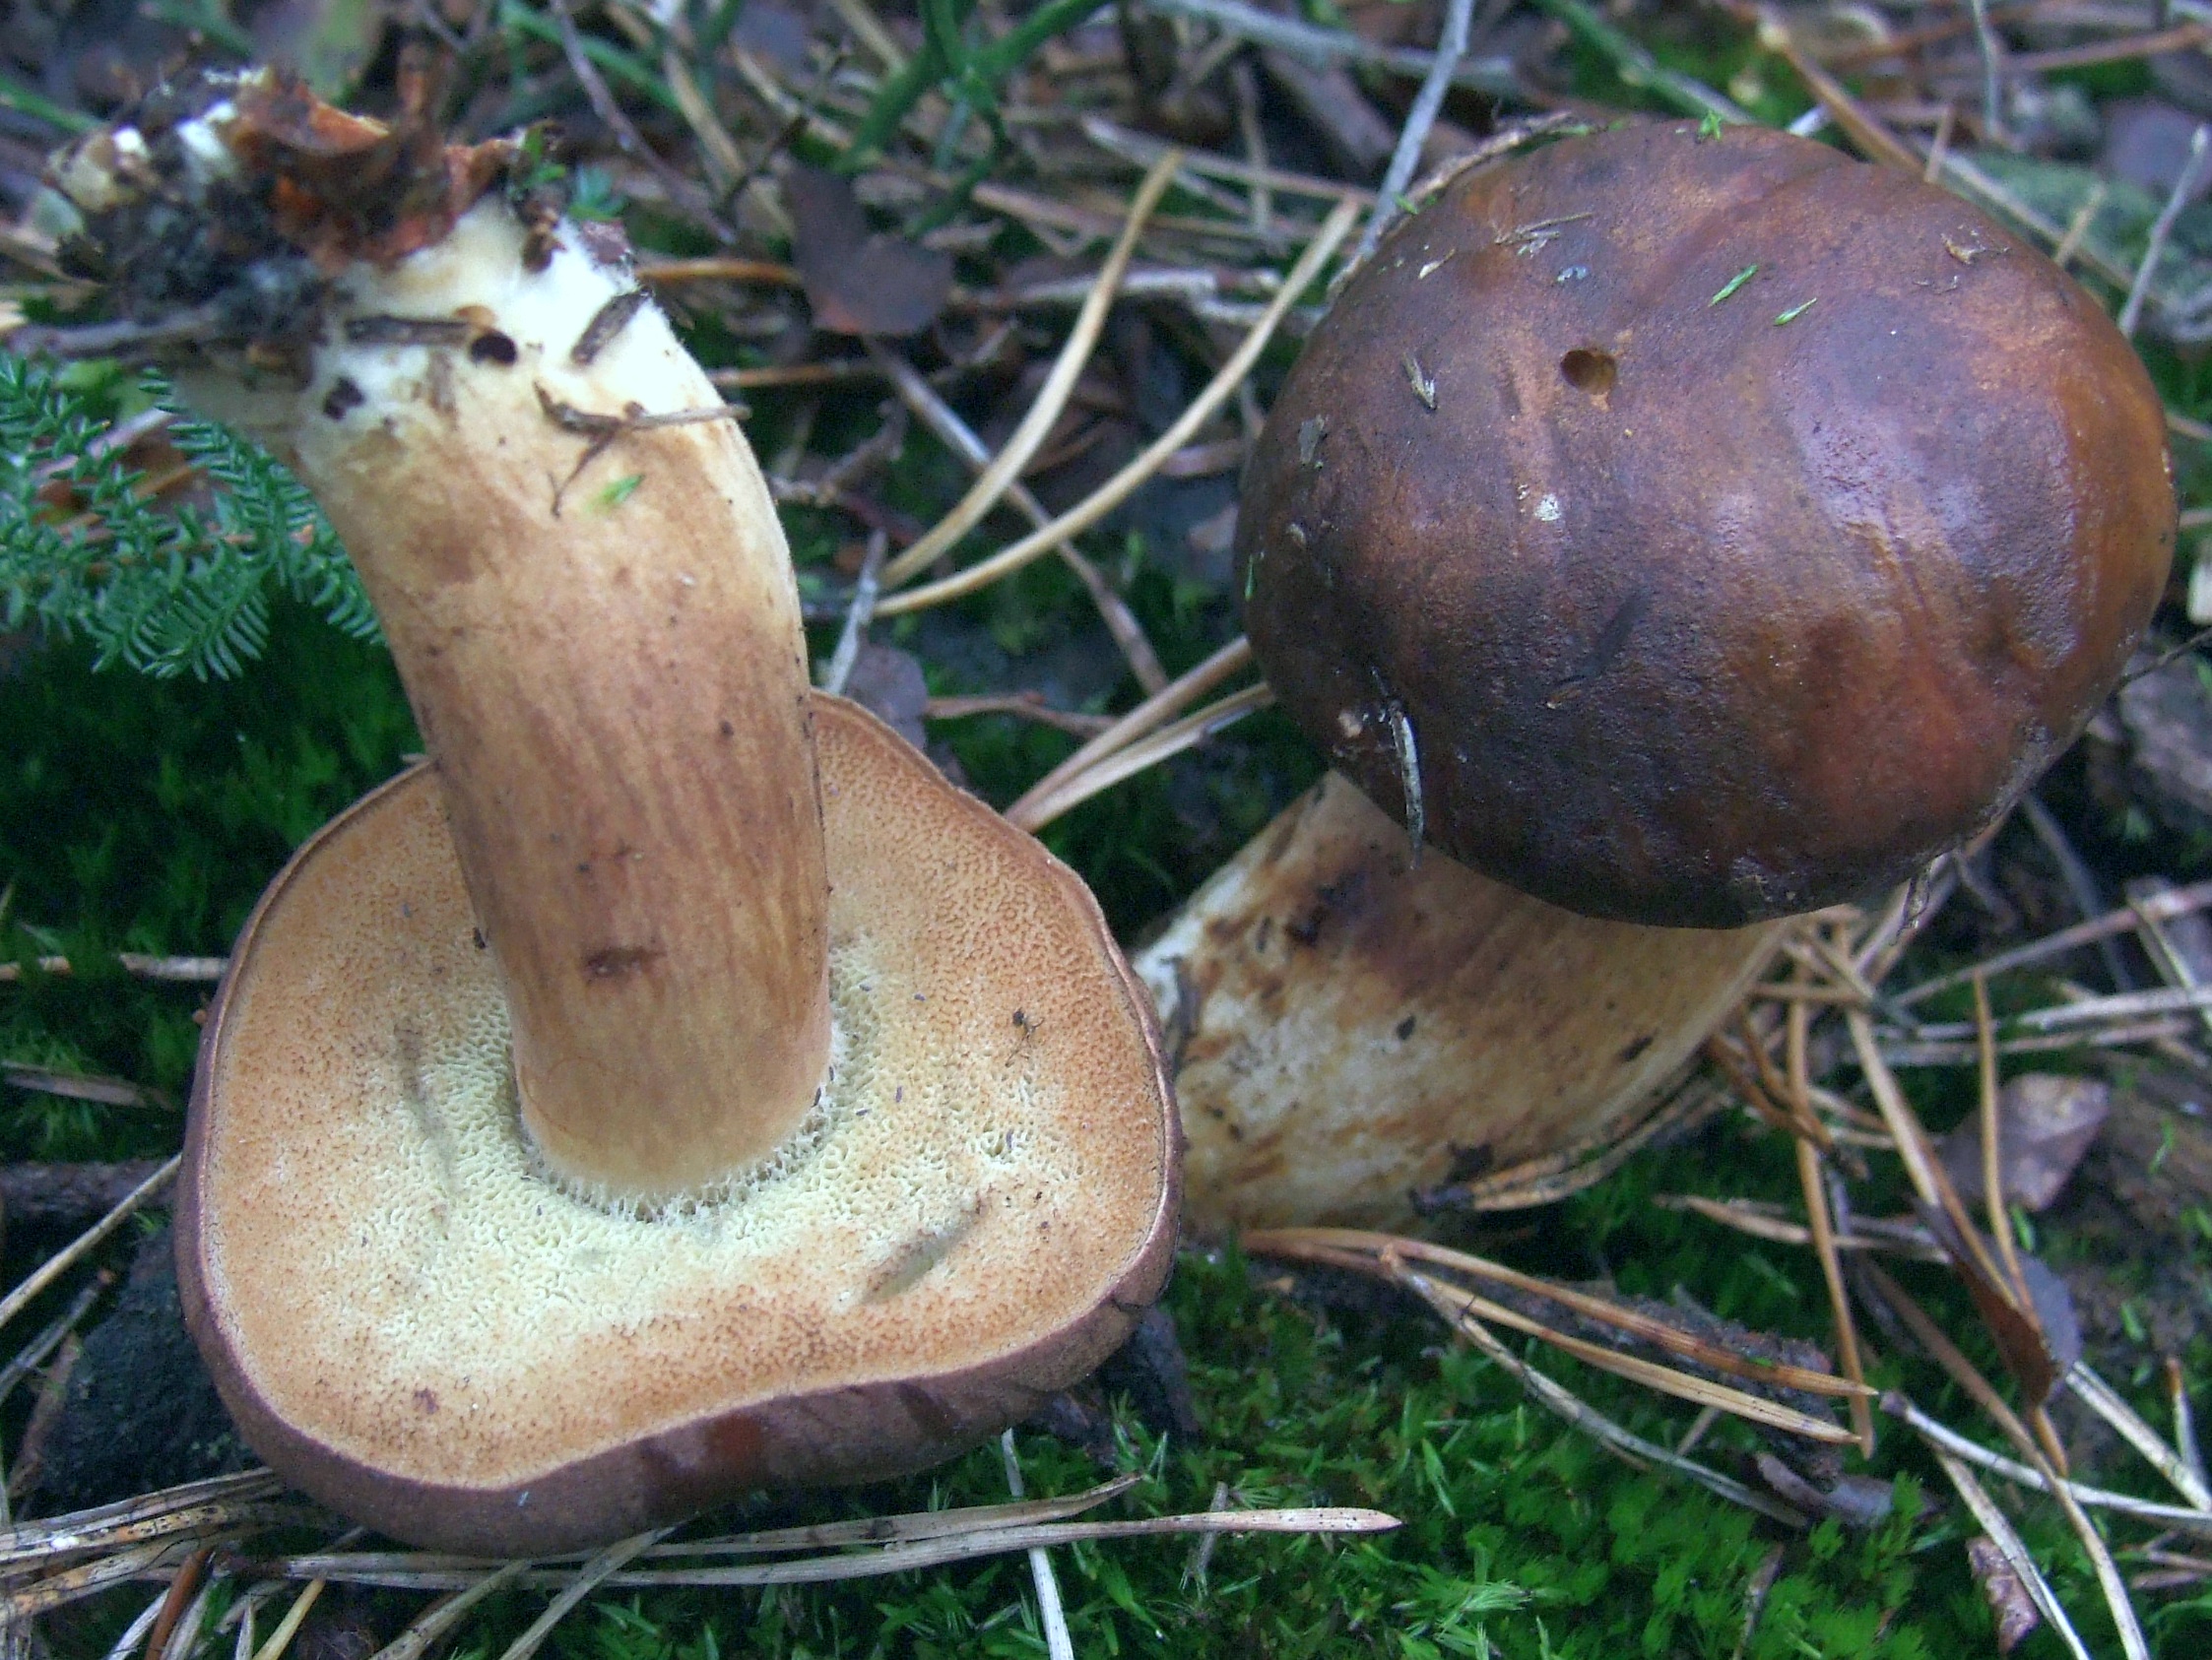
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Zdroj fotografie · CC BY-SA 4.0Imleria badia
Hlavní rozdíly
Hřib sametový (Xerocomellus pruinatus) může barvou klobouku připomínat hřib hnědý.
Xerocomellus chrysenteron
Hlavní rozdíly
Hřib žlutomasý (Xerocomellus chrysenteron) se vyznačuje kloboukem výrazně a hluboce rozpraskávajícím na políčka, v nichž se odhaluje načervenalá dužnina, a hladkými výtrusy. Hřib sametový má pokožku obvykle celistvou a nerozpraskanou a jeho výtrusy pokrývají jemné podélné rýhy. Český atlas navíc zdůrazňuje, že X. chrysenteron se objevuje dříve v sezóně, již na začátku léta.
Xerocomellus porosporus
Hlavní rozdíly
Hřib uťatovýtrusý (Xerocomellus porosporus) má charakteristicky uťaté vrcholky výtrusů a podle českého atlasu nemá tak výrazné červené zbarvení třeně. Samotná podobnost hnědých klobouků toto srovnání v terénu nerozhodne.
Xerocomellus ripariellus
Hlavní rozdíly
Načervenalé formy hřibu sametového mohou připomínat Xerocomellus ripariellus. Klofac uvádí, že X. pruinatus se liší žlutou, zřídka modrající dužninou, sametovým a zřídka praskajícím kloboukem, poněkud většími výtrusy a stavbou pokožky klobouku s variabilními koncovými buňkami, které jsou zpravidla užší než níže ležící subterminální buňky.
FAQ
Je hřib sametový jedlá houba?
Ano, hřib sametový je hodnotná jedlá houba. Cení se pro svou kompaktní, pevnou dužninu, která bývá málokdy červivá, a příjemnou, mírnou chuť. Hodí se do mnoha pokrmů.
Jak poznat hřib sametový?
Vyznačuje se tmavohnědým kloboukem s matným, jakoby ojíněným povlakem u mladých exemplářů. Třeň je v horní části nažloutlý a ve spodní části načervenalý a rourky jsou žluté, lehce modrající.
Kde a kdy roste hřib sametový?
Roste v listnatých a smíšených lesích, zejména pod buky a duby, vzácněji pod smrky. Plodnice se objevují od léta až do pozdního podzimu, nezřídka dokonce v listopadu.
Mění dužnina hřibu sametového po rozkrojení barvu?
Dužnina po rozkrojení je krémová nebo nažloutlá. V klobouku a horní části třeně může na vzduchu slabě modrat, zatímco ve spodní části třeně bývá načervenalá.
S jakými houbami lze hřib sametový zaměnit?
Nejčastěji bývá zaměňován s hřibem žlutomasým nebo žebrovaným. Hřib žlutomasý má výrazněji praskající pokožku s načervenalým podkladem, zatímco hřib sametový má tmavý a ojíněný klobouk.
Hodí se hřib sametový k sušení?
Ano, k sušení se skvěle hodí. Díky pevné struktuře dužniny si dobře zachovává tvar a po usušení má intenzivní, příjemné aroma, takže představuje skvělou přísadu do omáček a polévek.
Lze hřib sametový konzumovat za syrova?
Ne. Podle doporučení PSSE (Státní okresní hygienické stanice) by se volně rostoucí houby neměly konzumovat za syrova. Hřib sametový je jedlý druh, z obecných hygienických důvodů však vyžaduje tepelnou úpravu.
Jakou chuť a vůni má hřib sametový?
Tato houba má mírnou, příjemnou chuť a jemnou houbovou vůni. Nemá hořkou ani kyselou pachuť, díky čemuž je velmi univerzální přísadou do pokrmů.
Nadšenec
Názvy a historie
- Platné národní jméno
- suchogrzybek oprószony
- Platné vědecké jméno
- Xerocomellus pruinatus (Fr.) Šutara
- Další národní jména
- podgrzybek aksamitny, hřib sametový
- Dřívější národní jména
- borowik oprószony, grzyb omszony, podgrzybek oprószony
Pozorování doma
Výtrusný prach
- Potřebný materiál
- čerstvý, zralý klobouk, list papíru, sklenice nebo miska, voda
- Čas
- 2–24 h
- Provedení
- Položte klobouk spodní stranou na papír.
- Přidejte kapku vody navrch a přikryjte.
- Po 2–24 hodinách klobouk zvedněte a prohlédněte si otisk.
Co hledat
- Barva výtrusného prachu
- Barva výtrusného prachu: zelený. Barva výtrusného prachu: hnědý.
- Odstín výtrusného prachu
- Odstín výtrusného prachu: hnědoolivový. Odstín výtrusného prachu: olivově hnědý.
Pod mikroskopem
- Potřebný materiál
- světelný mikroskop, podložní a krycí sklíčko, jehla, voda, výtrusy z výtrusného prachu
- Provedení
- Přeneste jehlou trochu výtrusného prachu na sklíčko.
- Přidejte kapku vody, přikryjte sklíčkem a prohlédněte výtrusy.
Co hledat
- Tvar výtrusu
- Tvar výtrusu: elipsoidní. Tvar výtrusu: vřetenovitý.
- Rozměry výtrusu
- Délka 10–15,7 µm, šířka 4–6,4 µm.
Rozměry porovnávejte po kalibraci měřítka mikroskopu.
Ekologie a rozšíření
- Vápenitost půdy
- Vápenitost půdy: vápnitý.
- Listnaté stromy v okolí
- Listnaté stromy v okolí: dub nebo buk.
Listnaté stromy v okolí: buk nebo dub. - Jehličnaté stromy v okolí
- Jehličnaté stromy v okolí: smrk.
- Mykorhizní partneři
- Obecná vazba druhu: Mykorhizní partneři: buky (obecný seznam partnerů).
Obecná vazba druhu: Mykorhizní partneři: duby (obecný seznam partnerů).
Historie a kultura
Taxonomická historie hřibu sametového odráží dlouholetý výzkum systematiky hřibovitých hub a revizi tradičně chápaných rodů. Druh původně popsal v 19. století Elias Magnus Fries pod jménem Boletus pruinatus a v pozdějším období byl v mykologické literatuře běžně řazen do rodu Xerocomus jako Xerocomus pruinatus.
Přelomovým momentem v taxonomické historii tohoto taxonu byla práce českého mykologa Josefa Šutary publikovaná v roce 2008 v časopise „Czech Mycology“ (ročník 60, číslo 1, s. 49–50). V této publikaci Šutara na základě podrobné analýzy mikro- i makromorfologických znaků vymezil nový rod Xerocomellus, do kterého dotyčný druh přeřadil a vytvořil novou nomenklatorickou kombinaci Xerocomellus pruinatus (Fr.) Šutara. Tato změna se stala trvalým referenčním bodem v moderní taxonomii hřibovitých v Evropě.
Jedlost a bezpečnost
Hřib sametový je jedlá houba, která se vyznačuje pevnou a pružnou dužninou. Základní podmínkou pro jeho bezpečnou konzumaci je důkladná tepelná úprava plodnic před požitím, například vařením nebo smažením. Konzumace plodnic v syrovém stavu nebo nedostatečně tepelně upravených může vést k zažívacím potížím. Pro kulinářské účely by se měly používat pouze mladé, zdravé a čerstvé plodnice.
Významným rizikovým faktorem je rychlé stárnutí plodnic a náchylnost jejich pletiv ke kažení. Staré, přezrálé, vodou nasáklé plodnice nebo plodnice vykazující jakékoli známky plesnivění nejsou vhodné ke konzumaci. Navíc, podobně jako u jiných hřibovitých hub, mohou plodnice vykazovat schopnost akumulovat znečišťující látky z půdy a okolního prostředí, a proto se doporučuje nesbírat exempláře rostoucí v bezprostřední blízkosti frekventovaných silnic a v silně průmyslových oblastech.
Pokud jde o chuťové vlastnosti, dužnina hřibu sametového se vyznačuje mírnou chutí bez hořkosti a jemnou, typicky houbovou vůní, díky čemuž nachází uplatnění v kuchyni jako běžná houba pro domácí použití.
Stanoviště a výskyt
Hřib sametový (Xerocomellus pruinatus) se vyskytuje v Evropě, především v listnatých a smíšených lesích, vzácněji v čistě jehličnatých porostech. Nálezy tohoto druhu jsou zaznamenávány také v parcích a krajinné zeleni. Houba tvoří mykorhizu s listnatými stromy, zejména s bukem lesním, duby a habrem obecným, a také s jehličnany, včetně smrku ztepilého. Preferuje čerstvé, na živiny bohaté, hlinité a písčitohlinité půdy, kde plodnice vyrůstají jednotlivě nebo ve skupinách na lesním opadu, mezi spadaným listím a v polštářích mechů.
Geografický areál druhu zahrnuje Evropu včetně střední a západní Evropy, na sever sahá do jižních oblastí Skandinávského poloostrova a na jih směrem ke Středomoří.
V klimatických podmínkách Polska připadá plodnice na období od září do listopadu (měsíce IX–XI), což odpovídá doloženému výskytu plodnic ve středoevropské fenologii. Výskyt druhu v dané oblasti závisí především na přítomnosti příhodných listnatých a smíšených porostů a vlhkých hlinitých půd.
Výzkumník
Jedlost a kuchyně
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Jedlost
- Jedlý — źródło oznaczenia
Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový · Kuchyňské využití: Hřib sametový je dobrá jedlá houba.
- Kulinářské hodnocení
- Chutný
Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový · Kuchyňské využití: dobrá jedlá houba, z druhů rodu Xerocomellus patrně nejchutnější. Source opinion; not a formal quality class or larval-infestation claim.
Vědecké názvy a taxonomie
- Platné vědecké jméno
Xerocomellus pruinatus (Fr.) Šutara
- Dřívější vědecká jména
- 1835 — Boletus pruinatus Fr.
1886 — Versipellis pruinata (Fr.) Quél.
1888 — Xerocomus pruinatus (Fr.) Quél.
1898 — Suillus pruinatus (Fr.) Kuntze
1992 — Boletellus pruinatus (Fr.) Klofac & Krisai[17]
Suchogrzybek oprószony należy do rodziny borowikowatych (Boletaceae) w rzędzie borowikowców (Boletales). Nazwa naukowa taksonu to Xerocomellus pruinatus (Fr.) Šutara. Kombinację tę opublikował w 2008 r. Josef Šutara pod numerem rejestracyjnym MB511898, przenosząc do nowego rodzaju gatunek opisany pierwotnie w 1835 r. przez Eliasa Friesa jako Boletus pruinatus Fr. Takie samo autorstwo bazonimu podaje baza Species Fungorum. W części opracowań pojawia się zapis „Fr. & Hök”, jednak Oolbekkink uzasadniał przypisanie pierwotnego opisu samemu Friesowi.
[17] [19] [13] [7] [15] [18]Wcześniejsze kombinacje oparte na tym samym epitecie gatunkowym obejmują Versipellis pruinata (Fr.) Quél. z 1886 r., Xerocomus pruinatus (Fr.) Quél. z 1888 r., Suillus pruinatus (Fr.) Kuntze z 1898 r. oraz Boletellus pruinatus (Fr.) Klofac & Krisai z 1992 r. Szereg ten tłumaczy, dlaczego w dawniejszej literaturze mikologicznej ten sam grzyb bywał umieszczany w różnych rodzajach.
[17] [19] [13] [7] [15] [18]W rejestrze Species Fungorum do synonimiki gatunku włączono także nazwy Boletus subtomentosus var. pascuus Pers. (1825), Boletus pascuus (Pers.) Corda (1841), Xerocomus pascuus (Pers.) Bon (1985 [1984]), Boletellus pruinatus var. pascuus (Pers.) Klofac & Krisai (1992) oraz Boletellus pruinatus f. luteocarnosus Klofac & Krisai (1992). Stanowią one historyczne przyporządkowania taksonomiczne w rangach odmiany i formy.
[17] [19] [13] [7] [15] [18]Rozsah taxonu a omezení určování
Identyfikacja mikroskopowa gatunków z rodzaju Xerocomellus opiera się przede wszystkim na strukturze skórki kapelusza oraz mikrorzeźbie zarodników. Zarodniki suchogrzybka oprószonego pokryte są drobnymi, podłużnymi prążkami, jednak autorzy Fungi of Temperate Europe zaznaczają, że struktury te pozostają niewidoczne w standardowej mikroskopii świetlnej. Wobec tego ani sama ciemna barwa kapelusza, ani intensywne sinienie nie wystarczają do jednoznacznego oznaczenia bez weryfikacji pozostałych cech.
[7] [6] [13] [9] [14] [8]Šutara badał głównie skrawki wysuszonych owocników (cięte ręcznie żyletką), z użyciem 3–10% NH4OH, niekiedy z dodatkiem czerwieni Kongo oraz odczynnika Melzera lub w czystym NH4OH; świeży materiał analizował w wodzie, odczynniku Melzera lub wodnym roztworze czerwieni Kongo, stosując również mikroskop SEM. Diagnoza całego rodzaju Xerocomellus obejmuje grubość skórki (80–)120–350(–500) µm, rurki do 10(–14) mm i kanciaste pory o średnicy 1–2,5 mm. Pileipellis tworzą równoległe łańcuszki komórek, których końce leżą na zbliżonym poziomie; u starszych owocników układ ten może się rozluźniać. Są to cechy i wymiary diagnozy rodzajowej, odrębne od indywidualnych pomiarów gatunkowych X. pruinatus.
[19]Cechy mikroskopowe rodzaju Xerocomellus obejmują ponadto słabo żelatynizującą tramę hymenoforu typu pośredniego z odległościami między strzępkami 2–4(–8) µm, przeważnie wrzecionowato-butelkowate pleurocystydy o ściankach do 0,6 µm, brak lub zredukowaną do 30(–40) µm boczną warstwę trzonu, płodną warstwę kaulohymenialną na trzonie oraz brak sprzążek na strzępkach. Brak osłony częściowej i pierścienia stanowi stałą cechę całego rodzaju.
[19] [6]W rewizji taksonomicznej Šutary uwzględniono 15 kolekcji zielnikowych tego gatunku: JŠ 078, 302, 336, 337, 341, 345, 1836, 1963, 1965, 1986, 2112, 4053, 4397, 4398 oraz 4399.
[19]Abstrakt pracy Peintner, Ladurner i Simoniniego z 2003 r. opisuje analizę 24 sekwencji rDNA-LSU wykazującą odrębne linie ośmiu taksonów, w tym pruinatus. Pomocne w diagnozie były cechy zarodników, komórki końcowe skórki oraz charakterystyczne strzępki typu pruinatus (pruinatus-hyphae). Autorzy wykazali jednak wielokrotne powstawanie w toku ewolucji podobnego prążkowania zarodników, ściętych wierzchołków oraz strzępek tego typu. Liczba 24 sekwencji odnosi się do całego badania obejmującego osiem taksonów.
[14]Badania Franka i współpracowników z 2020 r. nad północnoamerykańskimi przedstawicielami rodzaju Xerocomellus uwzględniały sekwencje referencyjne europejskiego X. pruinatus z bazy GenBank (LSU: AF514825 z okazu IB19961055, AF050644 oraz AF402140), wskazując na konieczność ostrożnej weryfikacji oznaczeń w publicznych repozytoriach sekwencji.
[8]Laboratorní diagnostika
Strukturované údaje
Pokožka klobouku
Reakce s činidly
- Reakce na alkalická činidla
- Reakce na alkalická činidla: beze změny barvy.
Reakce na alkalická činidla: beze změny barvy.
Výtrusy
- Délka výtrusu
- Délka výtrusu: 11–15 µm. [6]
Délka výtrusu: 10–14,5 µm. [9]
Délka výtrusu: 11–14 µm. [3]
Délka výtrusu: 11,5–14 µm. [7]
Délka výtrusu: 11,5–15 µm. [18]
Délka výtrusu: 11,4–14,9 µm. [18]
Délka výtrusu: 12,3–15,3 µm. [18]
Délka výtrusu: 12–15,7 µm. [18] - Forma ornamentace výtrusů
- Forma ornamentace výtrusů: rýhovaná. [7]
Forma ornamentace výtrusů: rýhovaná. [6]
Forma ornamentace výtrusů: rýhovaná. [9]
Forma ornamentace výtrusů: rýhovaná. [13] - Směr ornamentace výtrusu
- Směr ornamentace výtrusu: podélné. [7]
Materiál a metody výzkumu
- Výsledky zaznamenané v pramenech — Délka výtrusu
- 11,5–15 µm [18]
10–14,5 µm [9]
12–15,1 µm (skrajnie do 15,7 µm) [18]
11–15 µm [6]
11,5–14 µm [7]
11,4–14,9 µm [18]
12,3–15,3 µm [18]
11–14 µm [3] - Výsledky zaznamenané v pramenech — Šířka výtrusu
- 4,5–5,5 µm [9] [7]
4,2–5,7 µm [18]
4,4–5,4 µm (skrajnie do 6 µm) [18]
4,5–6 µm [6]
4,9–6,4 µm [18]
4,3–5,8 µm [18]
4–5 µm [3]
Metody i zapisy źródłowe — Source cap-cuticle microscopy; source-specific terminology and scantiness are not merged into one universal organisation.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza — zapis źródłowy: „Species Description: Pileipellis palisadoderm of septate hyphae of cylindrical, incrusted cells.” [6]
Metody i zapisy źródłowe — Source cap-cuticle microscopy; source-specific terminology and scantiness are not merged into one universal organisation.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza — zapis źródłowy: „Printed p.265 section9: somewhat irregular trichoderm; terminal cells(5.5–)8–14(–15.5)µm broad; incrustations scarce.” [13]
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „Terminal cells(5.5–)8–14(–15.5)µm broad.” [13]
Metody i zapisy źródłowe — ČMS species description; material, voucher, measurement count and medium unreported.
Długość zarodnika — zapis źródłowy: „11.5–14 × 4.5–5.5 µm; first axis.” [7]
Forma ornamentacji zarodnika — zapis źródłowy: „jemně podélně rýhované” [7]
Kierunek ornamentacji zarodnika — zapis źródłowy: „podélně rýhované” [7]
Kształt zarodnika — zapis źródłowy: „eliptické nebo vřetenovité” [7]
Szerokość zarodnika — zapis źródłowy: „11.5–14 × 4.5–5.5 µm; second axis.” [7]
Metody i zapisy źródłowe — Published species description; unreported individual material and numerical protocol.
Długość zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate. First axis.” [6]
Forma ornamentacji zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate.” [6]
Szerokość zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate. Second axis.” [6]
Metody i zapisy źródłowe — Published species description; unreported individual material and numerical protocol.
Długość zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope. First axis.” [9]
Forma ornamentacji zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope.” [9]
Szerokość zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope. Second axis.” [9]
Metody i zapisy źródłowe — Focal Xerocomellus pruinatus row, PDFpage81; individual microscopic material unreported.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „11–14×4–5µm, paired source axes.” [3]
Metody i zapisy źródłowe — 19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — Source B.pruinatus description, with collections Bos8335 (NL) and Oolbekkink207 (DE) listed, without assigning one individual SEM image to either voucher.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Source methods p.246: gold-coated stubs, 15kV JEOL JSM-35; source spore prints or tube fragments, not an inferred focal specimen preparation.
Forma ornamentacji zarodnika — zapis źródłowy: „Faint to distinct striae with SEM.” [13]
Ověření výskytu — rozsah a omezení
Materiał: Zbiór z Puszczy Bukowej w województwie zachodniopomorskim; status zweryfikowany potwierdzono w osobnym publicznym wpisie GRej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[18]Rozsah zpracování
Záznam vyžaduje doplnění před dokončením.
- Hledání regionů výskytu vyžaduje dořešení.
- Vazby dřívějších zjištění vyžadují opětovnou kontrolu.
- Nové zdroje vyžadují vypořádání informací zjištěných během rešerše.
Nejdůležitější látky a jejich účinek
W badaniu korzeni jodły pobrano w październiku 2012 r. po 16 kostek gleby 15 × 15 × 15 cm z czterech stanowisk: Kartuzy, Lipusz, Osusznica i Sławno (łącznie 64 monolity). Analizowano drobne korzenie poniżej 2 mm w trzech losowych podpróbach po około 250 wierzchołków. Oznaczenie ITS suchogrzybka oprószonego KP230473 wykazało 99% zgodności z UDB000481 przy kryterium badania przekraczającym 98% na odcinku co najmniej 450 pz. Udział gatunku wynosił odpowiednio 1,5 ± 0,3%, 1,7 ± 0,3%, 0,9 ± 0,2% oraz 2,0 ± 0,1% (średnia ± błąd standardowy, SE).
[16]W badanych drzewostanach jodłowych odczyn gleby mierzony w wodzie wynosił w poziomie organicznym (O) odpowiednio 3,9; 3,9; 3,9 i 4,0, a w poziomie mineralnym (A): 4,0; 4,6; 4,6 oraz 4,3. Typy gleb sklasyfikowano jako glebę kwaśną brunatną (Kartuzy, Lipusz, Sławno) oraz glebę płową (Osusznica).
[16]W doświadczeniu Zavišić i współautorów materiał buka z zasobniejszego w fosfor Bad Brückenau i ubogiego Unterlüß przeniesiono w październiku 2014 r. do wspólnego ogrodu w Getyndze, gdzie rósł do lipca 2015 r. Badano 40 roślin, po 10 na wariant i pochodzenie gleby; 20 otrzymało znacznik 33P, a 20 stanowiło kontrolę bez znacznika. Po miesiącu aklimatyzacji, 20 listopada 2014 r., zastosowano jednorazową dawkę 795 mg P na roślinę. Mikoryzy identyfikowano na podstawie sekwencji ITS przy kryterium zgodności ponad 97% i wyniku dopasowania (score) ponad 900 bitów, co pozwoliło rozpoznać 14 z 16 morfotypów.
[21]Po nawożeniu fosforem udział mikoryz suchogrzybka oprószonego zmniejszył się w materiale z gleby zasobnej w fosfor. Wynik testu ANOSIM p = 0,385 oznaczał jednak brak statystycznie istotnej zmiany struktury całej zbiorowości grzybów mikoryzowych w tej glebie, a nie oddzielny test liczebności samego gatunku. Nie rozpoznano mechanizmu pobierania fosforu przez izolowany szczep, a nierozpoznany morfotyp MT31 stanowił osobną pozycję. Wyjściowe pH gleby wynosiło 3,8 w Bad Brückenau i 3,5 w Unterlüß, co opisuje warunki miejsc pobrania, a nie optimum gatunku.
[21]W badaniu Kautmanovej i współautorów materiał zbierano na słowackich terenach pogórniczych w latach 2022–2024, a oznaczenia oparto na morfologii i sekwencjach ITS. Oczyszczone owocniki krojono i suszono do stałej masy w temperaturze do 60 °C; małe mielono w całości, a z dużych pobierano równe części kapelusza, trzonu i hymenoforu, uzyskując co najmniej 2 g homogenizowanego proszku. Do analizy ICP-MS mineralizowano 1 g suchego materiału kwasem azotowym, a następnie wodą królewską. Trzy wykonane powtórzenia miały charakter analityczny, a liczba niezależnych owocników gatunku nie została w pracy wyszczególniona.
[11]W materiale ze Słowacji stężenie kadmu w owocnikach z Gelnicy wynosiło 7,82 mg/kg suchej masy (wskaźnik THQ 0,8), a ze Zlatej Idki 3,95 mg/kg s.m. (THQ 0,4). Zawartość ołowiu wynosiła odpowiednio 4,86 mg/kg s.m. (THQ 0,1) w Gelnicy oraz 1,77 mg/kg s.m. przy współczynniku bioakumulacji BCF 0,001 w Zlatej Idce.
[11]W Gelnicy odnotowano rtęć na poziomie 14,23 mg/kg suchej masy, z modelowym wskaźnikiem zagrożenia THQ 7,6 oraz współczynnikiem biokoncentracji BCF 2,14, a także mangan w stężeniu 974 mg/kg suchej masy. THQ stanowi wskaźnik modelowy, a nie liczbę klinicznych zatruć, natomiast wysoki poziom manganu nie oznaczał jego bioakumulacji z podłoża (dla manganu publikacja wskazuje brak akumulacji z gleby). Wszystkie wartości dotyczą zbadanego suchego materiału bez przeliczania na świeżą masę i bez uogólniania na owocniki z innych obszarów.
[11]Stanoviště a výskyt
Stanoviště, oblast a sezóna
Gatunek wyrasta na ziemi w lasach liściastych, mieszanych i iglastych oraz w parkach. Assyov wymienia jako głównych partnerów mikoryzowych buki, a rzadziej dęby, natomiast autorzy czescy podają buki, dęby i świerki. W polskich rejestrach stanowiska obejmują kwaśne i żyzne buczyny, leśną ściółkę, obrzeża drzewostanów, pobliża nadrzecznych łęgów, a także ciepłe, piaszczyste murawy na skraju lasu dębowego. Sama obecność sosny, brzozy czy grabu w opisie drzewostanu nie stanowi bezpośredniego dowodu na tworzenie mikoryzy z tymi gatunkami drzew.
[7] [6] [18] [20] [9]Analizy molekularne korzeni jodły pospolitej (Abies alba) na Pomorzu potwierdziły obecność tego grzyba w ektomikoryzach na czterech stanowiskach zlokalizowanych poza naturalnym zasięgiem jodły. W badaniach w Niemczech zidentyfikowano go również w mikoryzach buka zwyczajnego (Fagus sylvatica). Wyniki te uzyskano bezpośrednio z sekwencjonowania ITS korzeni, co stanowi niezależne potwierdzenie laboratoryjne relacji mikoryzowej.
[16] [21]Assyov uznaje gatunek za szeroko rozpowszechniony w Europie, zaznaczając problem mylenia go z pokrewnymi taksonami. Czeski atlas określa go jako obfity, a europejski klucz jako pospolity. Władysław Wojewoda w 2003 r. przytaczał dawne stwierdzenie z Puszczy Białowieskiej oraz kategorię PL–Ex, a atlas leśny z 2021 r. odnotowywał historyczną ocenę uznającą go za gatunek bardzo rzadki, znany niemal wyłącznie z tego rejonu. Liczne współczesne udokumentowane stanowiska w Polsce (w tym późniejsze zgłoszenia pomorskie i z innych rejonów) wskazują jednak na znacznie szersze występowanie.
[20] [18] [6] [7] [9]W Wielkiej Brytanii zestawienie z 2013 r. wykazało obecność gatunku w 10 kwadratach siatki 1 × 1 km w latach 1913–1962 oraz w ponad 200 kwadratach w latach 1963–2012, kwalifikując go do kategorii najmniejszej troski (LC). Szacunek ponad 2000 dojrzałych osobników stanowi wynik modelowania opartego na bazach obserwacji, a nie bezwzględną liczbę zliczonych owocników.
[10]Potvrzené rozšíření
Všechny oblasti doložené v uložených údajích.
| Země | Oblasti a lokality | Plodnost | Podklady |
|---|---|---|---|
| Polsko | Západopomořanské vojvodství | IX–XI |
|
Zdroje
- grenoble 2015
- Boris Assyov, Xerocomus pruinatus
- Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový
- src-frank 2020
- Læssøe T., Petersen J.H., Frøslev T.G., Heilmann-Clausen J. 2025. Keys to the fungi of Temperate Europe,8XI 2025
- src-jncc 2013
- src-kautmanova 2026
- Oolbekkink G.T. 1991. The taxonomic value of the ornamentation of spores in The Xerocomus-group of Boletus. Persoonia14(3): 245–273
- src-peintner 2003-abstract
- src-ptmyk 2021
- src-rudawska 2016
- Species Fungorum, rekord 511898
- Marek Snowarski, Tx236, Xerocomellus pruinatus
- src-sutara 2008
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland7
- src-zavisic 2018