
Ядомы

Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


Махавік прыпудраны (Xerocomellus pruinatus) — гэта ядомы трубчасты грыб, які цэніцца за пругкую мякаць і позні перыяд плоданашэння. Яго шапка мае афарбоўку ад цёмна-карычневай да чырванавата-карычневай, а маладыя пладовыя целы пакрывае характэрны матавы, нібы абледзянелы налёт. Трубачкі жоўтыя, з узростам аліўкавыя, пры націсканні слаба сінеюць. Ножка жоўтая ўверсе і чырванаватая ўнізе. Расце ў лісцевых і мяшаных лясах, пераважна пад букамі або дубамі. Гэта смачны грыб для смажання, сушкі і марынавання.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у спелых пладовых цел: Форма капялюшыка: плоскі. - Покрыва капялюшыка
- Покрыва капялюшыка: замшавая.
Покрыва капялюшыка: замшавая або мучністы.
Покрыва капялюшыка: мучністы.
у маладых пладовых цел: Покрыва капялюшыка: голая або мучністы.
Покрыва капялюшыка: лямцаватая.
Покрыва капялюшыка: замшавая і мучністы. - Узор расколін паверхні
- у спелых пладовых цел: Узор расколін паверхні: патрэсканая на няроўныя ўчасткі.
- Колер капялюшыка
- Колер капялюшыка: чорна-карычневы.
Колер капялюшыка: чарнаваты.
Колер капялюшыка: карычневы.
Колер капялюшыка: цёмна-карычневы.
Колер капялюшыка: шэра-карычневы.
Колер капялюшыка: светла-карычневы.
Колер капялюшыка: вохрысты.
Колер капялюшыка: аліўкава-карычневы.
Колер капялюшыка: чырвоны.
Колер капялюшыка: чырвона-карычневы.
Колер капялюшыка: чырвоны (на краі капялюшыка).
Колер капялюшыка: вінны (на краі капялюшыка). - Дыяметр капялюшыка
- Дыяметр капялюшыка складае да 120 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
- Форма пор
- Форма пор: вуглаватыя.
- Колер пор пасля пашкоджання
- Колер пор пасля пашкоджання: сіні.
Колер пор пасля пашкоджання: сіні.
Колер пор пасля пашкоджання: без змены колеру.
Колер пор пасля пашкоджання: Сіне-зялёны. - Колер трубачак пасля пашкоджання
- Колер трубачак пасля пашкоджання: сіні.
Колер трубачак пасля пашкоджання: сіні.
Колер трубачак пасля пашкоджання: без змены колеру. - Натуральны колер пор
- Натуральны колер пор: бледна-жоўты.
Натуральны колер пор: ярка-жоўты.
Натуральны колер пор: жоўты.
у спелых пладовых цел: Натуральны колер пор: жоўта-аліўкавы.
у спелых пладовых цел: Натуральны колер пор: аранжавы. - Натуральны колер трубачак
- Натуральны колер трубачак: бледна-жоўты.
Натуральны колер трубачак: жоўты.
у спелых пладовых цел: Натуральны колер трубачак: жоўта-аліўкавы.
Ножка і аснова
- Форма ножкі
- Форма ножкі: цыліндрычны.
Форма ножкі: цыліндрычны або булавападобны. - Аснова ножкі
- у маладых пладовых цел: Аснова ножкі: булавападобная.
Аснова ножкі: патоўшчаная. - Колер ножкі
- у маладых пладовых цел: Колер ножкі: жоўты.
у спелых пладовых цел, у ніжняй частцы ножкі: Колер ножкі: чырвоны або чырвона-карычневы.
Колер ножкі: бледна-жоўты або жоўты.
у верхняй частцы ножкі: Колер ножкі: жоўты.
у ніжняй частцы ножкі: Колер ножкі: карычняваты.
Колер ножкі: жоўты і чырвоны.
у верхняй частцы ножкі: Колер ножкі: лімонна-жоўты. - Покрыва паверхні ножкі
- Покрыва паверхні ножкі: шматкаватая.
Покрыва паверхні ножкі: зярністая.
Покрыва паверхні ножкі: мучністы і валакністая. - Узор паверхні ножкі
- Узор паверхні ножкі: плямісты.
- Колер арнаментацыі ножкі
- Колер арнаментацыі ножкі: чырвоны.
Колер арнаментацыі ножкі: аранжавы, жоўта-зялёны, чырвоны або чырвона-карычневы.
у ніжняй частцы ножкі: Колер арнаментацыі ножкі: абрыкосавая або чырвоны. - Афарбоўка паверхні ножкі пасля пашкоджання
- Афарбоўка паверхні ножкі пасля пашкоджання: сіні (паверхня ножкі).
Афарбоўка паверхні ножкі пасля пашкоджання: сіні (паверхня ножкі).
Афарбоўка паверхні ножкі пасля пашкоджання: карычневы (паверхня ножкі). - Даўжыня ножкі
- Даўжыня ножкі: 40–100 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 10–25 mm.
Мякаць
- Колер мякаці
- Колер мякаці: жоўты.
Колер мякаці: жаўтаваты (мякаць капялюшыка).
Колер мякаці: жоўты (мякаць ножкі).
Колер мякаці: бледна-жоўты (мякаць капялюшыка).
Колер мякаці: карычняваты (мякаць каля асновы ножкі).
Колер мякаці: жаўтаваты або белаватая (мякаць капялюшыка). - Шчыльнасць мякаці
- Шчыльнасць мякаці: шчыльны (мякаць капялюшыка).
Шчыльнасць мякаці: шчыльны. - Смак мякаці
- Смак мякаці: слабы.
- Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: сіні.
Колер мякаці пасля пашкоджання: сіні.
Колер мякаці пасля пашкоджання: Сіне-зялёны (мякаць капялюшыка).
Колер мякаці пасля пашкоджання: Сіне-зялёны (мякаць ножкі). - Пах мякаці
- Пах мякаці: грыбны, слабы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: лісцевы лес або хвойны лес.
Месцапражыванне: лісцевы лес, змешаны лес або парк.
Месцапражыванне: змешаны лес, парк або лісцевы лес. - Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку.
Характар росту пладовых цел: зрослыя пладовыя целы. - Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з верасня да лістапада.
- Арэал распаўсюджання
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Кулінарная ацэнка
- Смачны
З чым можна паблытаць
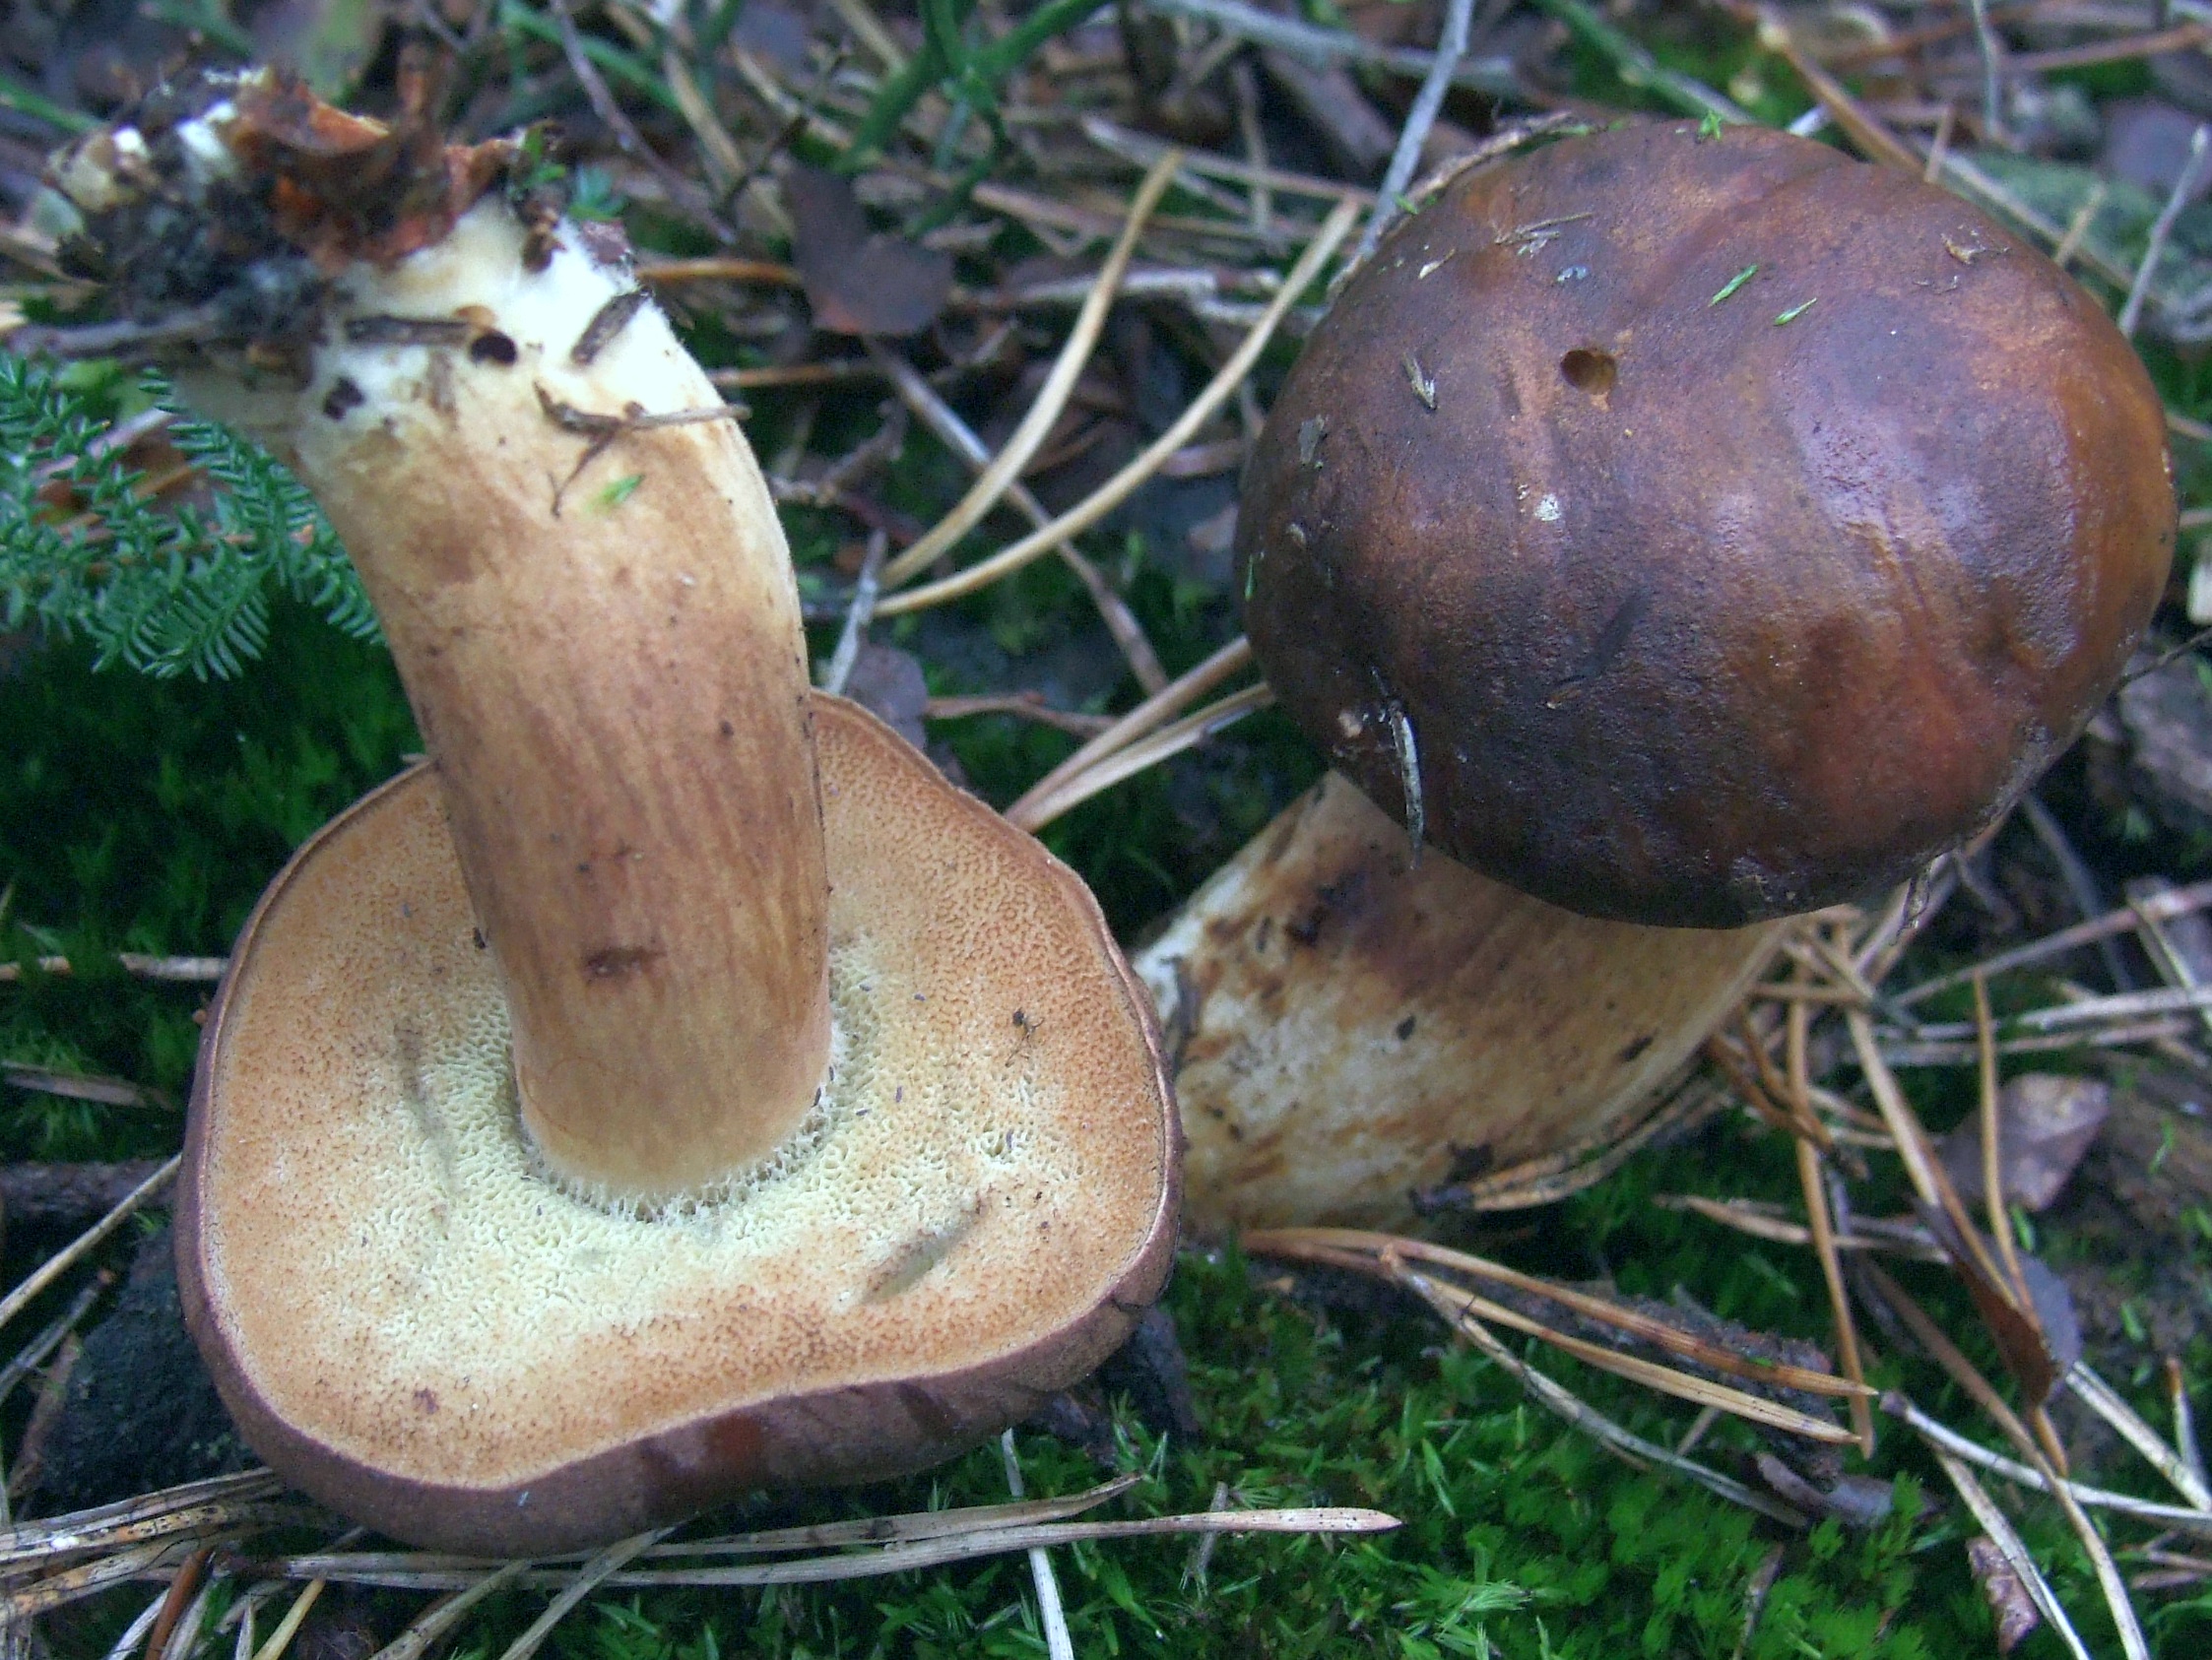
Jerzy Opioła · CC BY-SA 4.0
Korekta kolorów: Selso, 2020 (wersja źródłowa).
Крыніца фота · CC BY-SA 4.0Imleria badia
Асноўныя адрозненні
Сухагрыб апылены (Xerocomellus pruinatus) можа нагадваць падгрыбка карычневага афарбоўкай шапкі.
Xerocomellus chrysenteron
Асноўныя адрозненні
Махавік залацісты (Xerocomellus chrysenteron) адрозніваецца шапкай, якая выразніста і глыбока трэскаецца на ўчасткі, у якіх агаляецца чырванаватая мякаць, а таксама гладкімі спорамі. Махавік прыпудраны мае скурку звычайна аднастайную і непатрэсканую, а яго споры пакрытыя дробнымі падоўжнымі палоскамі. Чэшскі атлас падкрэслівае таксама, што X. chrysenteron з'яўляецца раней у сезоне, ужо ў пачатку лета.
Xerocomellus porosporus
Асноўныя адрозненні
Махавік зрэзанаспоравы (Xerocomellus porosporus) мае характэрна зрэзаныя верхавіны спор і, паводле чэшскага атласа, не мае такой выразністай чырвонай афарбоўкі ножкі. Само па сабе падабенства карычневых шапак не дазваляе канчаткова вызначыць від у палявых умовах.
Xerocomellus ripariellus
Асноўныя адрозненні
Чырванаватыя формы махавіка прыпудранага могуць нагадваць Xerocomellus ripariellus. Клофак паказвае, што X. pruinatus адрозніваецца жоўтай мякаццю, якая рэдка сінее, аксаміцістай шапкай, якая рэдка трэскаецца, крыху буйнейшымі спорамі і будовай скуркі шапкі са зменлівымі канцавымі клеткамі, якія, як правіла, вузейшыя за падканцавыя клеткі, што ляжаць ніжэй.
FAQ
Ці з'яўляецца махавік прыпудраны ядомым грыбам?
Так, махавік прыпудраны з'яўляецца каштоўным ядомым грыбам. Ён цэніцца за шчыльную, пругкую мякаць, якая рэдка бывае чарвівай, а таксама за прыемны, мяккі смак. Падыходзіць для многіх страў.
Як пазнаць махавіка прыпудранага?
Ён характарызуецца цёмна-карычневай шапкай з матавым, нібы заінелым налётам у маладых экзэмпляраў. Ножка жаўтаватая ў верхняй частцы і чырванаватая ўнізе, а трубачкі жоўтыя, злёгку сінеюць.
Дзе і калі расце махавік прыпудраны?
Расце ў лісцевых і мяшаных лясах, асабліва пад букамі і дубамі, радзей пад елкамі. Пладовыя целы з'яўляюцца з лета да позняй восені, нярэдка нават у лістападзе.
Ці змяняе мякаць махавіка прыпудранага колер пасля разрэзвання?
Мякаць пасля разрэзвання крэмавая або жаўтаватая. У шапцы і верхняй частцы ножкі яна можа слаба сінець пад уздзеяннем паветра, тады як у ніжняй частцы ножкі бывае чырванаватай.
З якімі грыбамі можна паблытаць махавіка прыпудранага?
Найчасцей яго блытаюць з махавіком залацістым або рабрыстым. Махавік залацісты мае мацней патрэсканую скурку з чырванаватым фонам, у той час як прыпудраны мае цёмную і нібы заінелую шапку.
Ці падыходзіць махавік прыпудраны для сушкі?
Так, выдатна падыходзіць для сушкі. Дзякуючы шчыльнай структуры мякаці ён добра захоўвае форму, а пасля высушвання мае інтэнсіўны, прыемны водар, з'яўляючыся выдатным дадаткам да соусаў і супоў.
Ці можна ўжываць махавік прыпудраны ў сырым выглядзе?
Не. Паводле рэкамендацый Дзяржаўнай раённай санітарна-эпідэміялагічнай станцыі (PSSE), дзікарослыя грыбы не варта ўжываць сырымі. Махавік прыпудраны з'яўляецца ядомым відам, але з агульных санітарных меркаванняў патрабуе тэрмічнай апрацоўкі.
Які смак і пах мае махавік прыпудраны?
Гэты грыб мае мяккі, прыемны смак і далікатны грыбны пах. Ён не мае горкага ці кіслага прысмаку, дзякуючы чаму з'яўляецца вельмі ўніверсальным інгрэдыентам для страў.
Аматар
Назвы і гісторыя
- Obowiązująca nazwa krajowa
- suchogrzybek oprószony
- Obowiązująca nazwa taksonomiczna
- Xerocomellus pruinatus (Fr.) Šutara
- Inne nazwy krajowe
- podgrzybek aksamitny
- Dawne nazwy krajowe
- borowik oprószony, grzyb omszony, podgrzybek oprószony
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: зялёны. Колер споравага адбітка: карычневы.
- Адценне споравага адбітка
- Адценне споравага адбітка: карычнева-аліўкавы. Адценне споравага адбітка: аліўкава-карычневы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Форма споры
- Форма споры: эліпсоідны. Форма споры: верацёнападобны.
- Памеры споры
- Даўжыня 10–15,7 µm, шырыня 4–6,4 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Экалогія і распаўсюджванне
- Вапнавасць глебы
- Вапнавасць глебы: вапнавы.
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: дуб або бук.
Лісцевыя дрэвы ў наваколлі: бук або дуб. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: елка.
- Мікарызныя партнёры
- Агульная сувязь віду: Мікарызныя партнёры: Fagus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Quercus (агульны пералік партнёраў).
Гісторыя і культура
Таксанамічная гісторыя махавіка прыпудранага адлюстроўвае шматгадовыя даследаванні сістэматыкі баравіковых грыбоў і перагляд традыцыйна разумелых родаў. Від першапачаткова быў апісаны ў XIX стагоддзі Эліясам Магнусам Фрысам пад назвай Boletus pruinatus, а пазней у мікалагічнай літаратуры яго паўсюдна адносілі да роду Xerocomus як Xerocomus pruinatus.
Пераломным момантам у таксанамічнай гісторыі гэтага таксона стала праца чэшскага міколага Ёзэфа Шутары, апублікаваная ў 2008 годзе ў часопісе «Czech Mycology» (том 60, выпуск 1, с. 49–50). У гэтай публікацыі Шутара вылучыў новы род Xerocomellus на падставе дакладнага аналізу мікра- і макрамарфалагічных прыкмет, перанёсшы разгляданы від у гэты род і ўсталяваўшы новую наменклатурную камбінацыю Xerocomellus pruinatus (Fr.) Šutara. Гэта змяненне стала трывалым арыентырам у сучаснай таксанаміі баравіковых у Еўропе.
Ядомасць і бяспека
Махавік прыпудраны з'яўляецца ядомым грыбам, які вылучаецца шчыльнай і пругкай мякаццю. Асноўнай умовай яго бяспечнага спажывання з'яўляецца дбайная тэрмічная апрацоўка пладовых цел перад ужываннем, напрыклад, шляхам адварвання або абсмажвання. Спажыванне пладовых цел у сырым або недастаткова правараным выглядзе можа прывесці да расстройстваў страўнікава-кішачнага тракту. Для кулінарных мэт варта выкарыстоўваць выключна маладыя, здаровыя і свежыя пладовыя целы.
Істотным фактарам рызыкі з'яўляецца хуткае старэнне пладовых цел і схільнасць іх тканак да псавання. Старыя, пераспелыя, насычаныя вадой асобнікі або тыя, што маюць якія-небудзь прыкметы цвілі, непрыдатныя для спажывання. Акрамя таго, як і ў выпадку іншых трубчастых грыбоў, пладовыя целы могуць выяўляць здольнасць акумуляваць забруджванні з глебы і навакольнага асяроддзя, таму рэкамендуецца адмовіцца ад збору асобнікаў, якія растуць у непасрэднай блізкасці ад дарог з інтэнсіўным рухам і на моцна прамыслова развітых тэрыторыях.
Што тычыцца смакавых якасцей, мякаць махавіка прыпудранага характарызуецца лагодным смакам без гаркаты і далікатным, тыпова грыбным пахам, дзякуючы чаму ён знаходзіць прымяненне ў кулінарыі як хатні грыб.
Месцапражыванне і сустракальнасць
Махавік прыпудраны (Xerocomellus pruinatus) сустракаецца на тэрыторыі Еўропы, перш за ўсё ў лісцевых і мяшаных лясах, радзей у чыстых іглічных дрэвастоях. Месцапражыванні гэтага віду адзначаюцца таксама ў парках і ландшафтных насаджэннях. Грыб утварае мікарызу з лісцевымі дрэвамі, асабліва з букам лясным, дубамі і грабам звычайным, а таксама з іглічнымі дрэвамі, у тым ліку з елкай еўрапейскай. Аддае перавагу свежым, багатым на пажыўныя рэчывы, гліністым і пясчана-гліністым глебам, дзе пладовыя целы вырастаюць паасобку або групамі на лясным подсціле, сярод апалага лісця і курцін імхоў.
Геаграфічны арэал віду ахоплівае Еўропу, у тым ліку Цэнтральную і Заходнюю Еўропу, дасягаючы на поўначы паўднёвых раёнаў Скандынаўскага паўвострава і на поўдні ў напрамку басейна Міжземнага мора.
У кліматычных умовах Польшчы сезон плоданашэння прыпадае на перыяд з верасня па лістапад (месяцы IX–XI), што адпавядае задакументаванаму з'яўленню пладовых цел у феналогіі Цэнтральнай Еўропы. Прысутнасць віду ў дадзеным рэгіёне залежыць найперш ад наяўнасці спрыяльных лісцевых і мяшаных дрэвастояў, а таксама вільготных гліністых глеб.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový · Kuchyňské využití: Hřib sametový je dobrá jedlá houba.
- Кулінарная ацэнка
- Смачны
Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový · Kuchyňské využití: dobrá jedlá houba, z druhů rodu Xerocomellus patrně nejchutnější. Source opinion; not a formal quality class or larval-infestation claim.
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Xerocomellus pruinatus (Fr.) Šutara
- Ранейшыя навуковыя назвы
- 1835 — Boletus pruinatus Fr.
1886 — Versipellis pruinata (Fr.) Quél.
1888 — Xerocomus pruinatus (Fr.) Quél.
1898 — Suillus pruinatus (Fr.) Kuntze
1992 — Boletellus pruinatus (Fr.) Klofac & Krisai[17]
Suchogrzybek oprószony należy do rodziny borowikowatych (Boletaceae) w rzędzie borowikowców (Boletales). Nazwa naukowa taksonu to Xerocomellus pruinatus (Fr.) Šutara. Kombinację tę opublikował w 2008 r. Josef Šutara pod numerem rejestracyjnym MB511898, przenosząc do nowego rodzaju gatunek opisany pierwotnie w 1835 r. przez Eliasa Friesa jako Boletus pruinatus Fr. Takie samo autorstwo bazonimu podaje baza Species Fungorum. W części opracowań pojawia się zapis „Fr. & Hök”, jednak Oolbekkink uzasadniał przypisanie pierwotnego opisu samemu Friesowi.
[17] [19] [13] [7] [15] [18]Wcześniejsze kombinacje oparte na tym samym epitecie gatunkowym obejmują Versipellis pruinata (Fr.) Quél. z 1886 r., Xerocomus pruinatus (Fr.) Quél. z 1888 r., Suillus pruinatus (Fr.) Kuntze z 1898 r. oraz Boletellus pruinatus (Fr.) Klofac & Krisai z 1992 r. Szereg ten tłumaczy, dlaczego w dawniejszej literaturze mikologicznej ten sam grzyb bywał umieszczany w różnych rodzajach.
[17] [19] [13] [7] [15] [18]W rejestrze Species Fungorum do synonimiki gatunku włączono także nazwy Boletus subtomentosus var. pascuus Pers. (1825), Boletus pascuus (Pers.) Corda (1841), Xerocomus pascuus (Pers.) Bon (1985 [1984]), Boletellus pruinatus var. pascuus (Pers.) Klofac & Krisai (1992) oraz Boletellus pruinatus f. luteocarnosus Klofac & Krisai (1992). Stanowią one historyczne przyporządkowania taksonomiczne w rangach odmiany i formy.
[17] [19] [13] [7] [15] [18]Межы таксона і абмежаванні вызначэння
Identyfikacja mikroskopowa gatunków z rodzaju Xerocomellus opiera się przede wszystkim na strukturze skórki kapelusza oraz mikrorzeźbie zarodników. Zarodniki suchogrzybka oprószonego pokryte są drobnymi, podłużnymi prążkami, jednak autorzy Fungi of Temperate Europe zaznaczają, że struktury te pozostają niewidoczne w standardowej mikroskopii świetlnej. Wobec tego ani sama ciemna barwa kapelusza, ani intensywne sinienie nie wystarczają do jednoznacznego oznaczenia bez weryfikacji pozostałych cech.
[7] [6] [13] [9] [14] [8]Šutara badał głównie skrawki wysuszonych owocników (cięte ręcznie żyletką), z użyciem 3–10% NH4OH, niekiedy z dodatkiem czerwieni Kongo oraz odczynnika Melzera lub w czystym NH4OH; świeży materiał analizował w wodzie, odczynniku Melzera lub wodnym roztworze czerwieni Kongo, stosując również mikroskop SEM. Diagnoza całego rodzaju Xerocomellus obejmuje grubość skórki (80–)120–350(–500) µm, rurki do 10(–14) mm i kanciaste pory o średnicy 1–2,5 mm. Pileipellis tworzą równoległe łańcuszki komórek, których końce leżą na zbliżonym poziomie; u starszych owocników układ ten może się rozluźniać. Są to cechy i wymiary diagnozy rodzajowej, odrębne od indywidualnych pomiarów gatunkowych X. pruinatus.
[19]Cechy mikroskopowe rodzaju Xerocomellus obejmują ponadto słabo żelatynizującą tramę hymenoforu typu pośredniego z odległościami między strzępkami 2–4(–8) µm, przeważnie wrzecionowato-butelkowate pleurocystydy o ściankach do 0,6 µm, brak lub zredukowaną do 30(–40) µm boczną warstwę trzonu, płodną warstwę kaulohymenialną na trzonie oraz brak sprzążek na strzępkach. Brak osłony częściowej i pierścienia stanowi stałą cechę całego rodzaju.
[19] [6]W rewizji taksonomicznej Šutary uwzględniono 15 kolekcji zielnikowych tego gatunku: JŠ 078, 302, 336, 337, 341, 345, 1836, 1963, 1965, 1986, 2112, 4053, 4397, 4398 oraz 4399.
[19]Abstrakt pracy Peintner, Ladurner i Simoniniego z 2003 r. opisuje analizę 24 sekwencji rDNA-LSU wykazującą odrębne linie ośmiu taksonów, w tym pruinatus. Pomocne w diagnozie były cechy zarodników, komórki końcowe skórki oraz charakterystyczne strzępki typu pruinatus (pruinatus-hyphae). Autorzy wykazali jednak wielokrotne powstawanie w toku ewolucji podobnego prążkowania zarodników, ściętych wierzchołków oraz strzępek tego typu. Liczba 24 sekwencji odnosi się do całego badania obejmującego osiem taksonów.
[14]Badania Franka i współpracowników z 2020 r. nad północnoamerykańskimi przedstawicielami rodzaju Xerocomellus uwzględniały sekwencje referencyjne europejskiego X. pruinatus z bazy GenBank (LSU: AF514825 z okazu IB19961055, AF050644 oraz AF402140), wskazując na konieczność ostrożnej weryfikacji oznaczeń w publicznych repozytoriach sekwencji.
[8]Лабараторная дыягностыка
Dane ustrukturyzowane
Скурка шапкі
Рэакцыі з рэактывамі
- Рэакцыя на шчолачныя рэагенты
- Рэакцыя на шчолачныя рэагенты: без змены колеру.
Рэакцыя на шчолачныя рэагенты: без змены колеру.
Споры
- Даўжыня споры
- Даўжыня споры: 11–15 µm. [6]
Даўжыня споры: 10–14,5 µm. [9]
Даўжыня споры: 11–14 µm. [3]
Даўжыня споры: 11,5–14 µm. [7]
Даўжыня споры: 11,5–15 µm. [18]
Даўжыня споры: 11,4–14,9 µm. [18]
Даўжыня споры: 12,3–15,3 µm. [18]
Даўжыня споры: 12–15,7 µm. [18] - Форма арнаментацыі споры
- Форма арнаментацыі споры: паласатая. [7]
Форма арнаментацыі споры: паласатая. [6]
Форма арнаментацыі споры: паласатая. [9]
Форма арнаментацыі споры: паласатая. [13] - Напрамак арнаментацыі споры
- Напрамак арнаментацыі споры: падоўжныя. [7]
Матэрыял і метады даследаванняў
- Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- 11,5–15 µm [18]
10–14,5 µm [9]
12–15,1 µm (skrajnie do 15,7 µm) [18]
11–15 µm [6]
11,5–14 µm [7]
11,4–14,9 µm [18]
12,3–15,3 µm [18]
11–14 µm [3] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- 4,5–5,5 µm [9] [7]
4,2–5,7 µm [18]
4,4–5,4 µm (skrajnie do 6 µm) [18]
4,5–6 µm [6]
4,9–6,4 µm [18]
4,3–5,8 µm [18]
4–5 µm [3]
Metody i zapisy źródłowe — Source cap-cuticle microscopy; source-specific terminology and scantiness are not merged into one universal organisation.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza — zapis źródłowy: „Species Description: Pileipellis palisadoderm of septate hyphae of cylindrical, incrusted cells.” [6]
Metody i zapisy źródłowe — Source cap-cuticle microscopy; source-specific terminology and scantiness are not merged into one universal organisation.
Inkrustacja strzępek skórki; Organizacja skórki kapelusza — zapis źródłowy: „Printed p.265 section9: somewhat irregular trichoderm; terminal cells(5.5–)8–14(–15.5)µm broad; incrustations scarce.” [13]
Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „Terminal cells(5.5–)8–14(–15.5)µm broad.” [13]
Metody i zapisy źródłowe — ČMS species description; material, voucher, measurement count and medium unreported.
Długość zarodnika — zapis źródłowy: „11.5–14 × 4.5–5.5 µm; first axis.” [7]
Forma ornamentacji zarodnika — zapis źródłowy: „jemně podélně rýhované” [7]
Kierunek ornamentacji zarodnika — zapis źródłowy: „podélně rýhované” [7]
Kształt zarodnika — zapis źródłowy: „eliptické nebo vřetenovité” [7]
Szerokość zarodnika — zapis źródłowy: „11.5–14 × 4.5–5.5 µm; second axis.” [7]
Metody i zapisy źródłowe — Published species description; unreported individual material and numerical protocol.
Długość zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate. First axis.” [6]
Forma ornamentacji zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate.” [6]
Szerokość zarodnika — zapis źródłowy: „Species Description: Spores11–15×4.5–6µm, striate. Second axis.” [6]
Metody i zapisy źródłowe — Published species description; unreported individual material and numerical protocol.
Długość zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope. First axis.” [9]
Forma ornamentacji zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope.” [9]
Szerokość zarodnika — zapis źródłowy: „Printed p.579 couplet73: spores10–14.5×4.5–5.5µm, very finely striated, not visible in a standard light microscope. Second axis.” [9]
Metody i zapisy źródłowe — Focal Xerocomellus pruinatus row, PDFpage81; individual microscopic material unreported.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „11–14×4–5µm, paired source axes.” [3]
Metody i zapisy źródłowe — 19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „19Nov2021, PuszczaBukowa Węglino, leg./det.GrażynaDomian; mean13.5×5.5µm,Qmean2.4. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „25Oct2023, BukoweZdroje, leg./det.GrażynaDomian; mean12.9×4.8µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „30Oct2023, BuczynoweWąwozy, leg./det.GrażynaDomian; mean13.1×4.9µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — 4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7. See original paired dimensions.” [18]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „4Nov2023, TrawiastaBuczyna, leg./det.GrażynaDomian; mean13.5×5.0µm,Qmean2.7. Source Q range, not recomputed from unpaired dimension endpoints.” [18]
Metody i zapisy źródłowe — Source B.pruinatus description, with collections Bos8335 (NL) and Oolbekkink207 (DE) listed, without assigning one individual SEM image to either voucher.
Metoda źródłowa. Technika: skaningowa mikroskopia elektronowa (SEM). Opis metody w źródle: Source methods p.246: gold-coated stubs, 15kV JEOL JSM-35; source spore prints or tube fragments, not an inferred focal specimen preparation.
Forma ornamentacji zarodnika — zapis źródłowy: „Faint to distinct striae with SEM.” [13]
Праверка пашырэння — абсяг і абмежаванні
Materiał: Zbiór z Puszczy Bukowej w województwie zachodniopomorskim; status zweryfikowany potwierdzono w osobnym publicznym wpisie GRej.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[18]Аб’ём апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Найважнейшыя рэчывы і іх дзеянне
W badaniu korzeni jodły pobrano w październiku 2012 r. po 16 kostek gleby 15 × 15 × 15 cm z czterech stanowisk: Kartuzy, Lipusz, Osusznica i Sławno (łącznie 64 monolity). Analizowano drobne korzenie poniżej 2 mm w trzech losowych podpróbach po około 250 wierzchołków. Oznaczenie ITS suchogrzybka oprószonego KP230473 wykazało 99% zgodności z UDB000481 przy kryterium badania przekraczającym 98% na odcinku co najmniej 450 pz. Udział gatunku wynosił odpowiednio 1,5 ± 0,3%, 1,7 ± 0,3%, 0,9 ± 0,2% oraz 2,0 ± 0,1% (średnia ± błąd standardowy, SE).
[16]W badanych drzewostanach jodłowych odczyn gleby mierzony w wodzie wynosił w poziomie organicznym (O) odpowiednio 3,9; 3,9; 3,9 i 4,0, a w poziomie mineralnym (A): 4,0; 4,6; 4,6 oraz 4,3. Typy gleb sklasyfikowano jako glebę kwaśną brunatną (Kartuzy, Lipusz, Sławno) oraz glebę płową (Osusznica).
[16]W doświadczeniu Zavišić i współautorów materiał buka z zasobniejszego w fosfor Bad Brückenau i ubogiego Unterlüß przeniesiono w październiku 2014 r. do wspólnego ogrodu w Getyndze, gdzie rósł do lipca 2015 r. Badano 40 roślin, po 10 na wariant i pochodzenie gleby; 20 otrzymało znacznik 33P, a 20 stanowiło kontrolę bez znacznika. Po miesiącu aklimatyzacji, 20 listopada 2014 r., zastosowano jednorazową dawkę 795 mg P na roślinę. Mikoryzy identyfikowano na podstawie sekwencji ITS przy kryterium zgodności ponad 97% i wyniku dopasowania (score) ponad 900 bitów, co pozwoliło rozpoznać 14 z 16 morfotypów.
[21]Po nawożeniu fosforem udział mikoryz suchogrzybka oprószonego zmniejszył się w materiale z gleby zasobnej w fosfor. Wynik testu ANOSIM p = 0,385 oznaczał jednak brak statystycznie istotnej zmiany struktury całej zbiorowości grzybów mikoryzowych w tej glebie, a nie oddzielny test liczebności samego gatunku. Nie rozpoznano mechanizmu pobierania fosforu przez izolowany szczep, a nierozpoznany morfotyp MT31 stanowił osobną pozycję. Wyjściowe pH gleby wynosiło 3,8 w Bad Brückenau i 3,5 w Unterlüß, co opisuje warunki miejsc pobrania, a nie optimum gatunku.
[21]W badaniu Kautmanovej i współautorów materiał zbierano na słowackich terenach pogórniczych w latach 2022–2024, a oznaczenia oparto na morfologii i sekwencjach ITS. Oczyszczone owocniki krojono i suszono do stałej masy w temperaturze do 60 °C; małe mielono w całości, a z dużych pobierano równe części kapelusza, trzonu i hymenoforu, uzyskując co najmniej 2 g homogenizowanego proszku. Do analizy ICP-MS mineralizowano 1 g suchego materiału kwasem azotowym, a następnie wodą królewską. Trzy wykonane powtórzenia miały charakter analityczny, a liczba niezależnych owocników gatunku nie została w pracy wyszczególniona.
[11]W materiale ze Słowacji stężenie kadmu w owocnikach z Gelnicy wynosiło 7,82 mg/kg suchej masy (wskaźnik THQ 0,8), a ze Zlatej Idki 3,95 mg/kg s.m. (THQ 0,4). Zawartość ołowiu wynosiła odpowiednio 4,86 mg/kg s.m. (THQ 0,1) w Gelnicy oraz 1,77 mg/kg s.m. przy współczynniku bioakumulacji BCF 0,001 w Zlatej Idce.
[11]W Gelnicy odnotowano rtęć na poziomie 14,23 mg/kg suchej masy, z modelowym wskaźnikiem zagrożenia THQ 7,6 oraz współczynnikiem biokoncentracji BCF 2,14, a także mangan w stężeniu 974 mg/kg suchej masy. THQ stanowi wskaźnik modelowy, a nie liczbę klinicznych zatruć, natomiast wysoki poziom manganu nie oznaczał jego bioakumulacji z podłoża (dla manganu publikacja wskazuje brak akumulacji z gleby). Wszystkie wartości dotyczą zbadanego suchego materiału bez przeliczania na świeżą masę i bez uogólniania na owocniki z innych obszarów.
[11]Месцапражыванне і сустракальнасць
Асяроддзе, рэгіён і сезон
Gatunek wyrasta na ziemi w lasach liściastych, mieszanych i iglastych oraz w parkach. Assyov wymienia jako głównych partnerów mikoryzowych buki, a rzadziej dęby, natomiast autorzy czescy podają buki, dęby i świerki. W polskich rejestrach stanowiska obejmują kwaśne i żyzne buczyny, leśną ściółkę, obrzeża drzewostanów, pobliża nadrzecznych łęgów, a także ciepłe, piaszczyste murawy na skraju lasu dębowego. Sama obecność sosny, brzozy czy grabu w opisie drzewostanu nie stanowi bezpośredniego dowodu na tworzenie mikoryzy z tymi gatunkami drzew.
[7] [6] [18] [20] [9]Analizy molekularne korzeni jodły pospolitej (Abies alba) na Pomorzu potwierdziły obecność tego grzyba w ektomikoryzach na czterech stanowiskach zlokalizowanych poza naturalnym zasięgiem jodły. W badaniach w Niemczech zidentyfikowano go również w mikoryzach buka zwyczajnego (Fagus sylvatica). Wyniki te uzyskano bezpośrednio z sekwencjonowania ITS korzeni, co stanowi niezależne potwierdzenie laboratoryjne relacji mikoryzowej.
[16] [21]Assyov uznaje gatunek za szeroko rozpowszechniony w Europie, zaznaczając problem mylenia go z pokrewnymi taksonami. Czeski atlas określa go jako obfity, a europejski klucz jako pospolity. Władysław Wojewoda w 2003 r. przytaczał dawne stwierdzenie z Puszczy Białowieskiej oraz kategorię PL–Ex, a atlas leśny z 2021 r. odnotowywał historyczną ocenę uznającą go za gatunek bardzo rzadki, znany niemal wyłącznie z tego rejonu. Liczne współczesne udokumentowane stanowiska w Polsce (w tym późniejsze zgłoszenia pomorskie i z innych rejonów) wskazują jednak na znacznie szersze występowanie.
[20] [18] [6] [7] [9]W Wielkiej Brytanii zestawienie z 2013 r. wykazało obecność gatunku w 10 kwadratach siatki 1 × 1 km w latach 1913–1962 oraz w ponad 200 kwadratach w latach 1963–2012, kwalifikując go do kategorii najmniejszej troski (LC). Szacunek ponad 2000 dojrzałych osobników stanowi wynik modelowania opartego na bazach obserwacji, a nie bezwzględną liczbę zliczonych owocników.
[10]Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Крыніцы |
|---|---|---|---|
| Польшча | Заходнепаморскае ваяводства | IX–XI |
|
Крыніцы
- grenoble 2015
- Boris Assyov, Xerocomus pruinatus
- Česká mykologická společnost, Xerocomellus pruinatus, hřib sametový
- src-frank 2020
- Læssøe T., Petersen J.H., Frøslev T.G., Heilmann-Clausen J. 2025. Keys to the fungi of Temperate Europe,8XI 2025
- src-jncc 2013
- src-kautmanova 2026
- Oolbekkink G.T. 1991. The taxonomic value of the ornamentation of spores in The Xerocomus-group of Boletus. Persoonia14(3): 245–273
- src-peintner 2003-abstract
- src-ptmyk 2021
- src-rudawska 2016
- Species Fungorum, rekord 511898
- Marek Snowarski, Tx236, Xerocomellus pruinatus
- src-sutara 2008
- Wojewoda W. 2003. Checklist of Polish larger Basidiomycetes. Biodiversity of Poland7
- src-zavisic 2018