
Їстівний

Дозволений до обігу
Установіть місцезнаходження, щоб побачити дані для свого регіону.


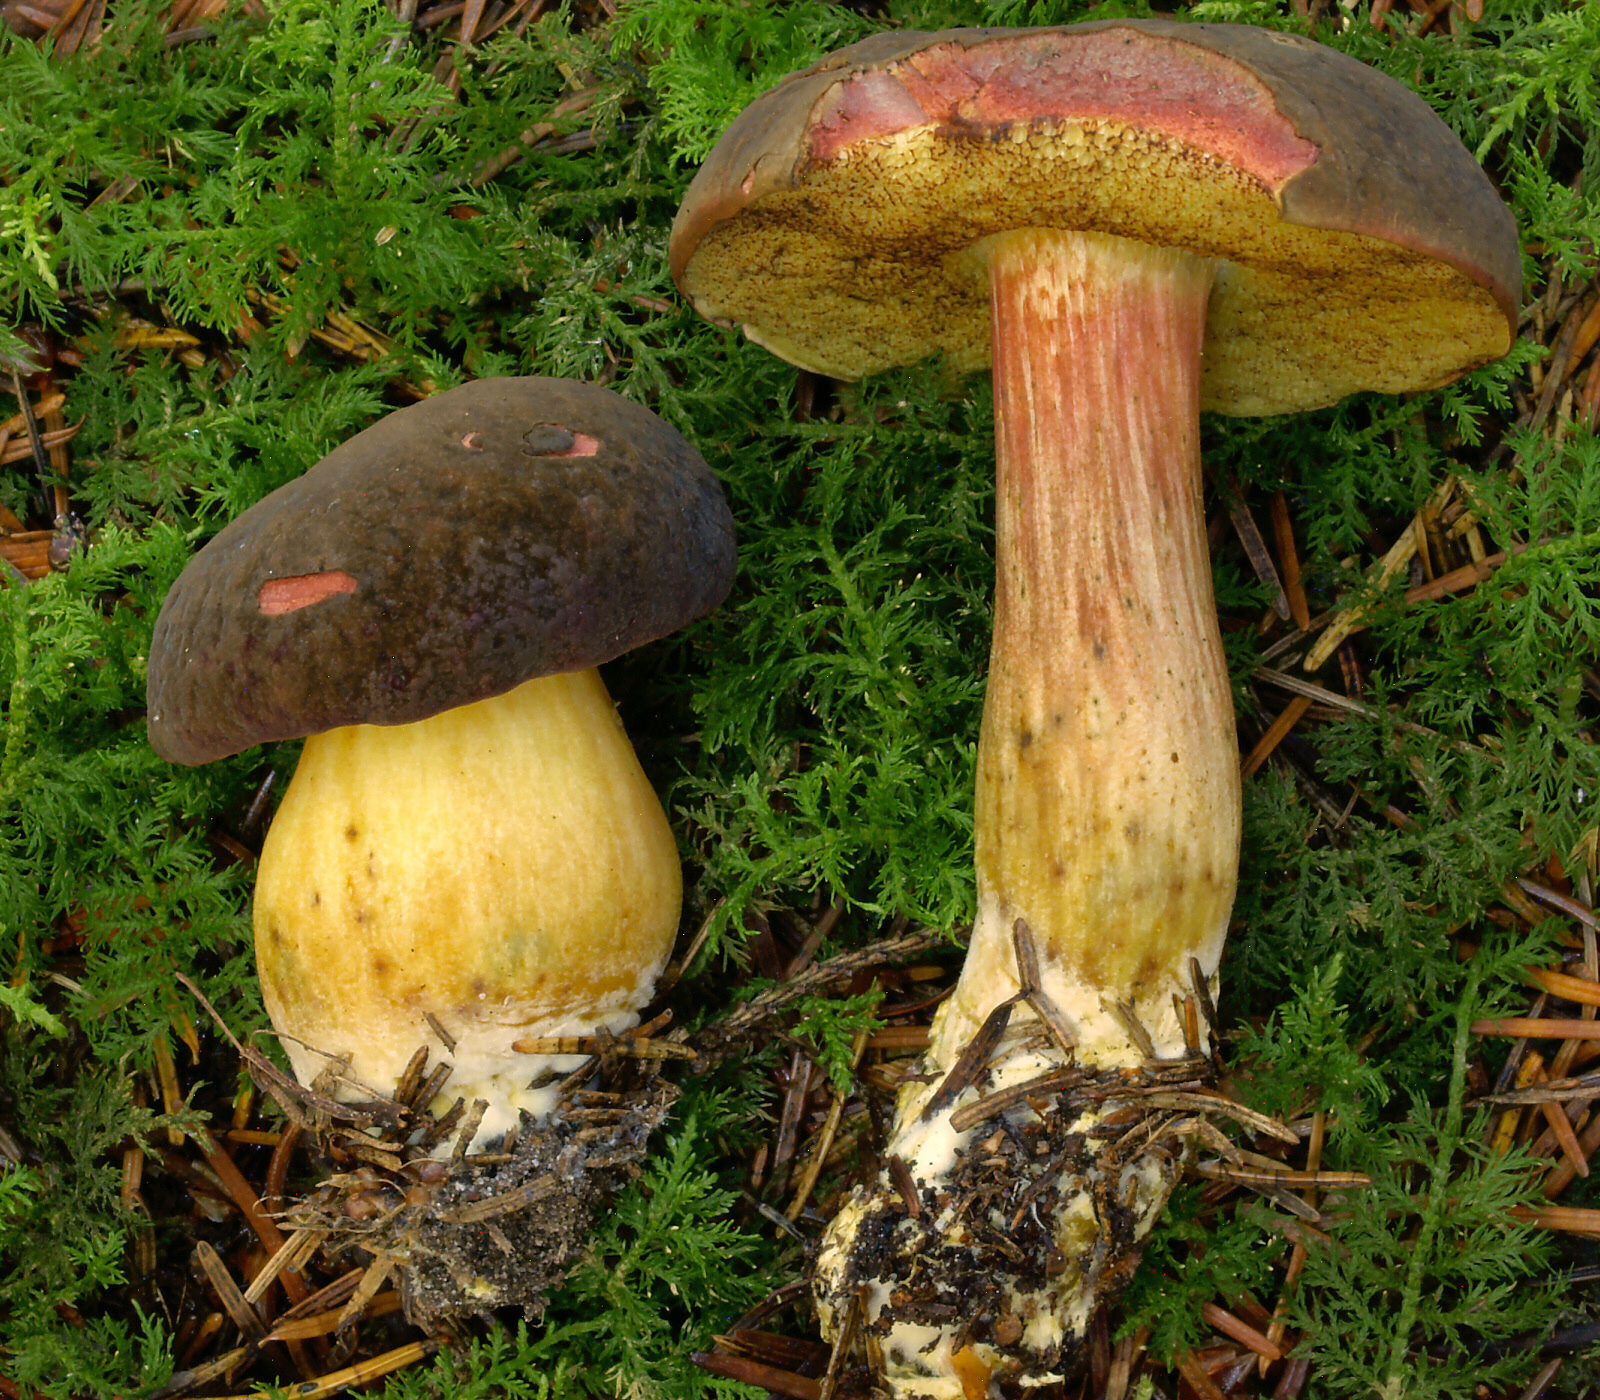
Польський гриб (Imleria badia), відомий також як підгрибок коричневий, є поширеним і цінним грибом польських лісів. Його каштанова або темно-коричнева шапинка в суху погоду матова й оксамитова, а під час вологої погоди стає слизькою. Жовтуватий низ шапинки синіє при натисканні. Ніжка коричнювата, поздовжньо-волокниста і без сіточки. Його можна зустріти в хвойних і листяних лісах, часто поруч із соснами та ялинами. Плодові тіла з'являються з літа, найрясніше восени. Це дуже смачний їстівний гриб, який охоче збирають для сушіння, смаження та маринування.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка, ніжка.
- Консистенція всього плодового тіла
- Консистенція всього плодового тіла: м’ясистий.
- Забарвлення міцелію біля основи плодового тіла
- Забарвлення міцелію біля основи плодового тіла: білувате або кремовий.
Шапинка
- Форма шапинки
- у молодих плодових тіл: Форма шапинки: напівкулястий.
у зрілих плодових тіл: Форма шапинки: опуклий.
у старих плодових тіл: Форма шапинки: плоский. - Поверхня шапинки
- у сухому стані: Поверхня шапинки: матовий, оксамитовий.
у мокрому стані: Поверхня шапинки: слизистий.
у мокрому стані: Поверхня шапинки: блискучий. - Покрив шапинки
- у сухому стані: Покрив шапинки: повстиста або пластівчаста.
- Колір шапинки
- Колір шапинки: золотисто-коричневий.
Колір шапинки: світло-коричневий.
Колір шапинки: іржавого кольору.
Колір шапинки: каштановий.
у зрілих плодових тіл: Колір шапинки: палево-коричневий.
Колір шапинки: темно-коричневий. - Положення краю
- у молодих плодових тіл: Положення краю: підгорнутий усередину.
- Виступ краю шапинки за межі гіменофора
- Виступ краю шапинки за межі гіменофора: виступає за межі гіменофора.
- Діаметр шапинки
- Діаметр шапинки становить 30–250 mm.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: трубочки.
Трубочки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: прирослий до ніжки (трубочки).
- Профіль гіменофора біля ніжки
- Профіль гіменофора біля ніжки: виїмчастий біля ніжки (трубочки).
- Заглиблення шару трубочок біля ніжки
- Заглиблення шару трубочок біля ніжки: втиснена біля ніжки.
- Колір гіменофора
- у молодих плодових тіл: Колір гіменофора: кремовий.
у зрілих плодових тіл: Колір гіменофора: тьмяно-жовта.
у молодих плодових тіл: Колір гіменофора: блідо-лимонно-жовта. - Форма пор
- у зрілих плодових тіл: Форма пор: неправильний.
Форма пор: кутасті. - Колір пор після пошкодження
- Колір пор після пошкодження: синій.
Колір пор після пошкодження: Синьо-зелений.
Колір пор після пошкодження: тьмяно-коричнева. - Природний колір пор
- Природний колір пор: світло-жовтий.
- Природний колір трубочок
- Природний колір трубочок: світло-жовтий.
Природний колір трубочок: оливково-зелено-жовта.
Ніжка та основа
- Положення ніжки
- Положення ніжки: центральний.
- Форма ніжки
- Форма ніжки: циліндричний.
Форма ніжки: булавоподібний.
у молодих плодових тіл: Форма ніжки: бочкоподібний.
у зрілих плодових тіл: Форма ніжки: циліндричний.
у молодих плодових тіл: Форма ніжки: циліндричний.
у зрілих плодових тіл: Форма ніжки: булавоподібний. - Колір ніжки
- Колір ніжки: коричневий.
Колір ніжки: палево-коричневий. - Покрив поверхні ніжки
- Покрив поверхні ніжки: волокниста.
Покрив поверхні ніжки: волокниста або пластівчаста.
Покрив поверхні ніжки: луската. - Колір орнаментації ніжки
- Колір орнаментації ніжки: коричневий.
Колір орнаментації ніжки: вохристо-коричневий. - Внутрішня будова ніжки
- Внутрішня будова ніжки: суцільний.
- Консистенція ніжки
- у зрілих плодових тіл: Консистенція ніжки: здерев’янілий.
- Довжина ніжки
- Довжина ніжки: 30–140 mm.
- Діаметр ніжки
- Діаметр ніжки: 10–50 mm.
- Вигин ніжки
- Вигин ніжки: зігнутий.
М'якуш
- Колір м’якуша
- Колір м’якуша: кремовий або лимонно-жовтий (м’якуш шапинки).
Колір м’якуша: кремовий або лимонно-жовтий (м’якуш ніжки).
Колір м’якуша: світло-жовтий.
Колір м’якуша: коричнюватий (м’якуш шапинки, під шкіркою). - Щільність м’якуша
- у молодих плодових тіл: Щільність м’якуша: щільний.
у зрілих плодових тіл: Щільність м’якуша: м’який (м’якуш шапинки). - Смак м’якуша
- Смак м’якуша: солодкий, слабкий.
Смак м’якуша: слабкий. - Колір м’якуша після пошкодження
- Колір м’якуша після пошкодження: синій (м’якуш шапинки).
у верхній частині ніжки: Колір м’якуша після пошкодження: синій (м’якуш ніжки).
Колір м’якуша після пошкодження: синій. - Запах м’якуша
- Запах м’якуша: грибний.
Запах м’якуша: слабкий.
Де і коли росте
- Оселище
- Оселище: хвойний ліс або листяний ліс.
- Субстрат
- Субстрат: ґрунт.
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці або невеликими групами.
Характер росту плодових тіл: групами. - Частота трапляння
- Частота трапляння: звичайний.
- Період плодоношення
- Плодові тіла з’являються з червня до листопада.
Плодові тіла з’являються переважно з вересня до листопада. - Територія поширення
Їстівність і кулінарія
- Їстівність
- Їстівний
- Кулінарна оцінка
- Дуже смачний
Право
Правила для місцезнаходження: Польща
- Охорона
- У Польщі вид не підлягає видовій охороні.
- Торгівля
- Дозволений до обігу
З чим можна сплутати
Boletus edulis
Основні відмінності
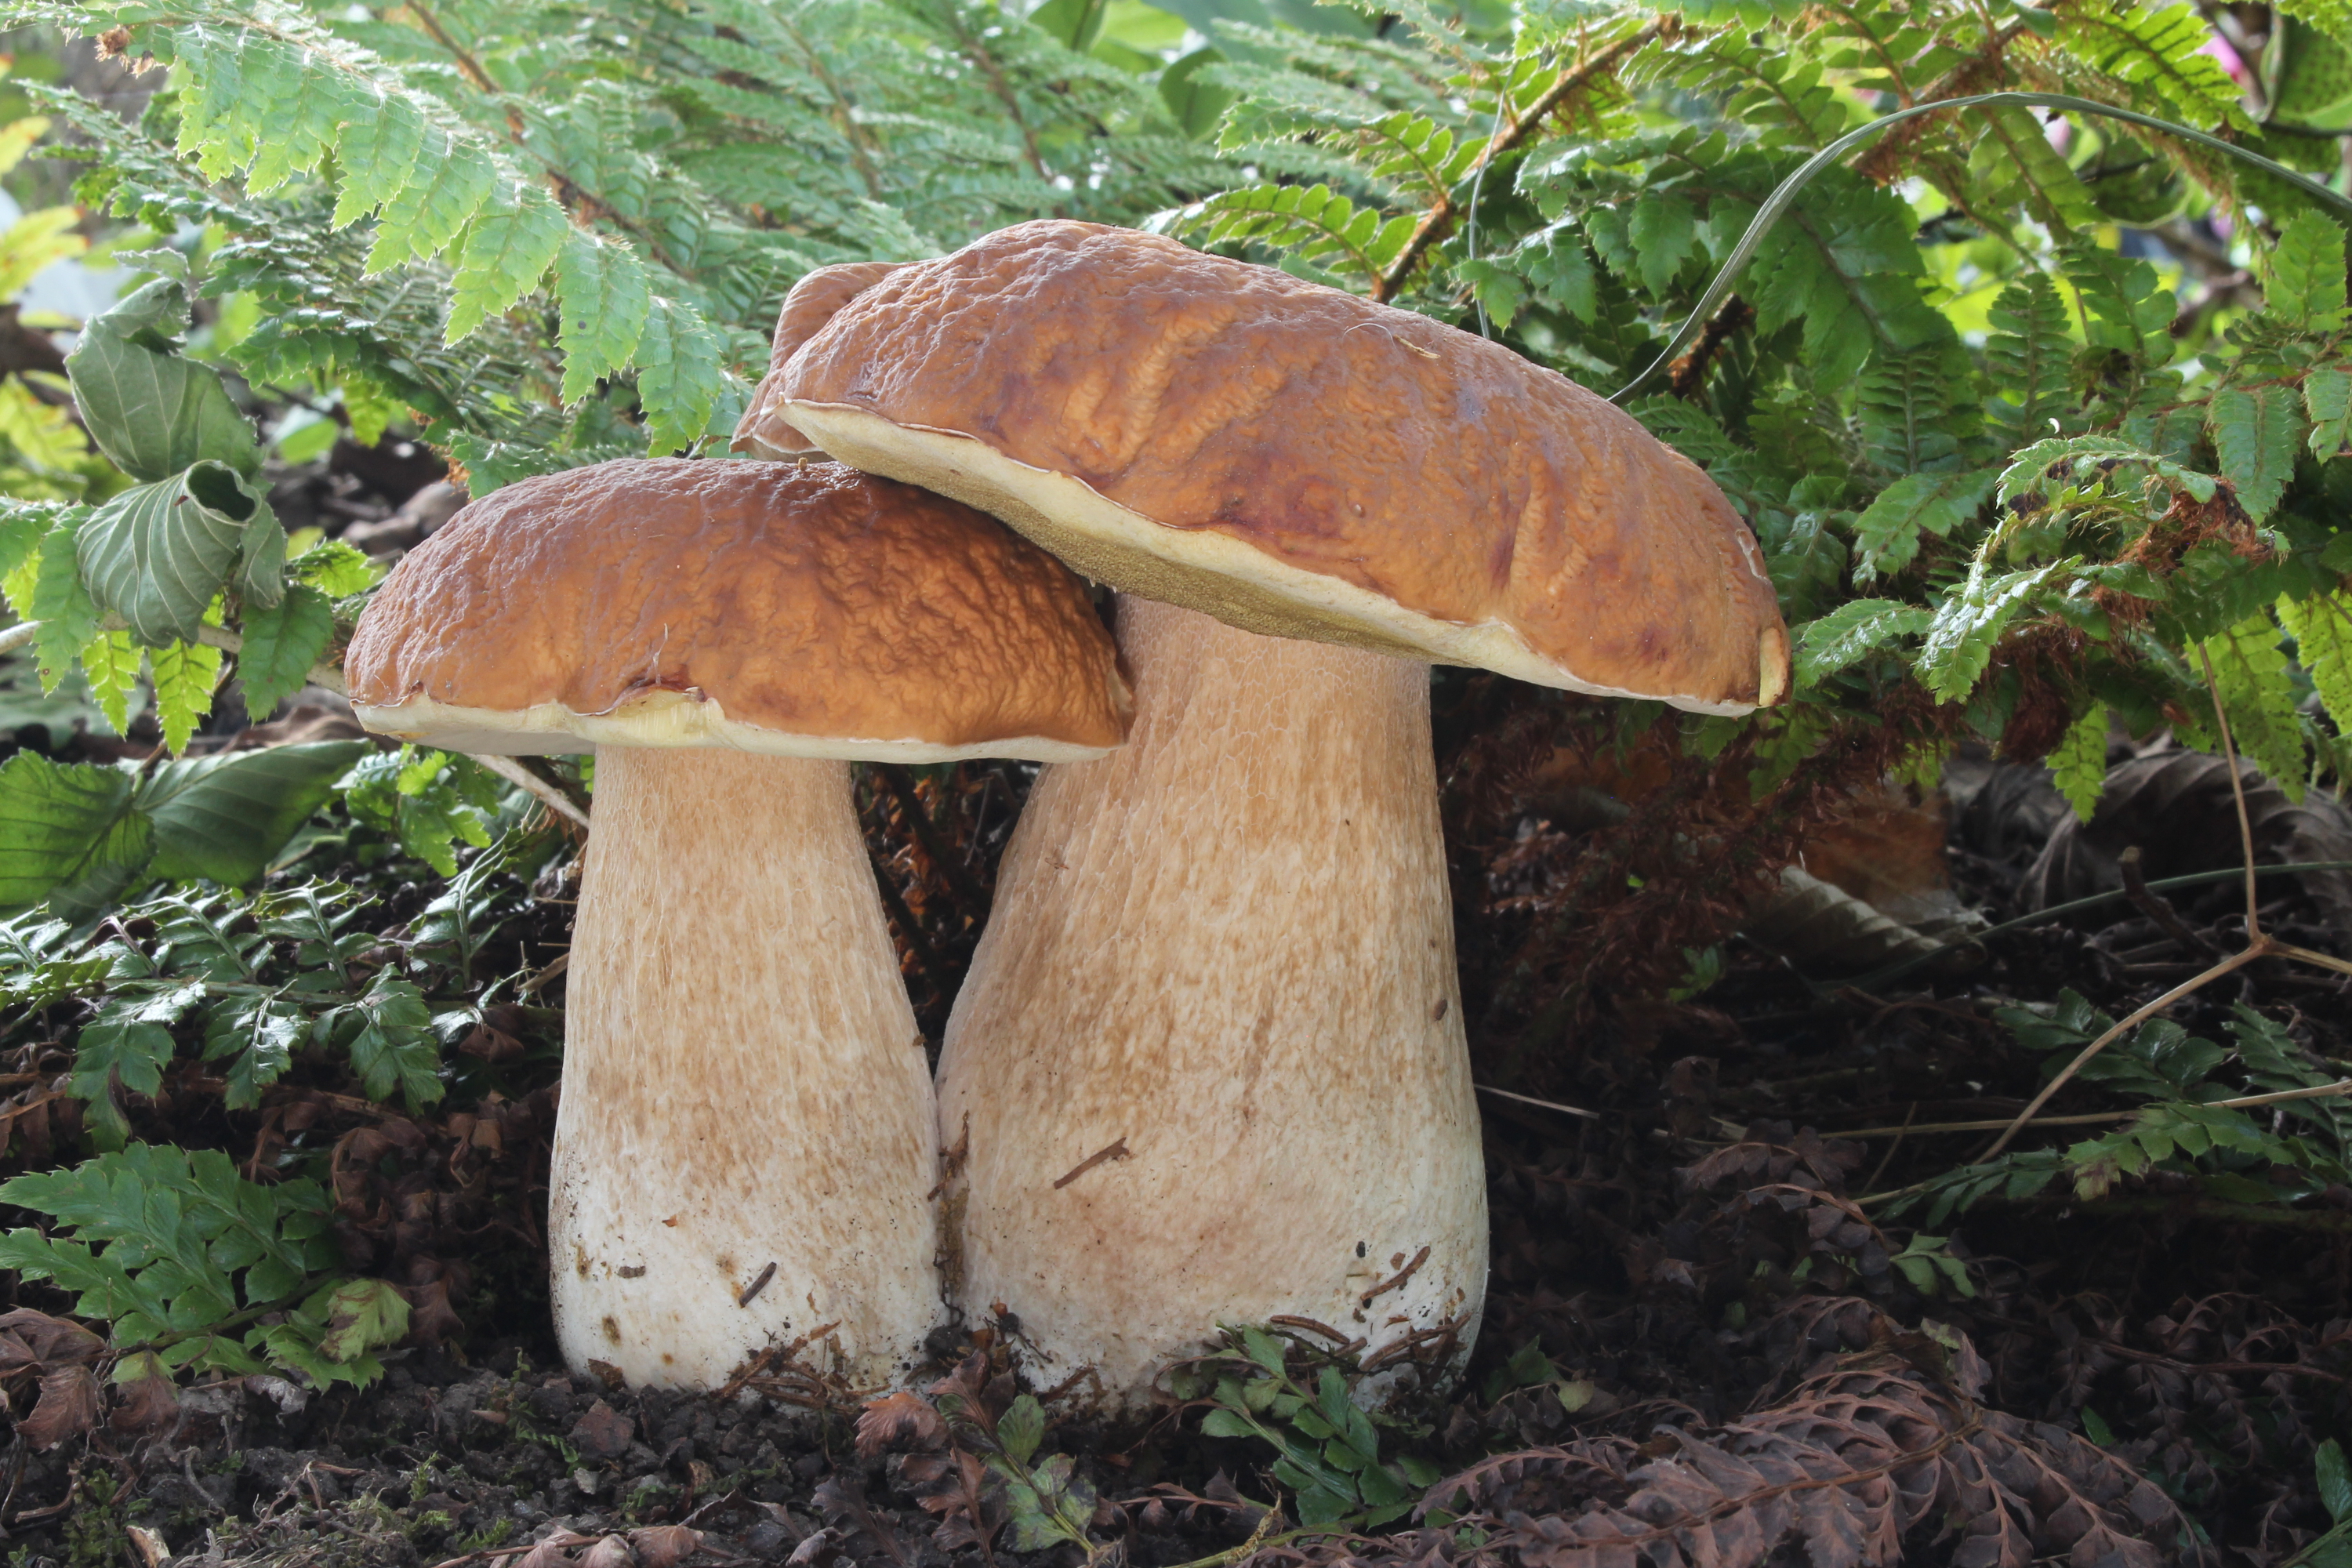
Польський гриб (Imleria badia) і боровик шляхетний (Boletus edulis) — це популярні їстівні гриби. Боровик шляхетний має ніжку зі світлою сіточкою та пори, які спочатку білі, а з віком стають від жовтих до жовто-оливкових і під натиском не змінюють забарвлення. Його м'якуш після розрізання залишається білим. Польський гриб має коричнювату ніжку, позбавлену сіточки, а пори під тиском виразно синіють. М'якуш польського гриба після розрізання синіє, особливо в шапинці та над трубочками.
Cyanoboletus pulverulentus
Основні відмінності
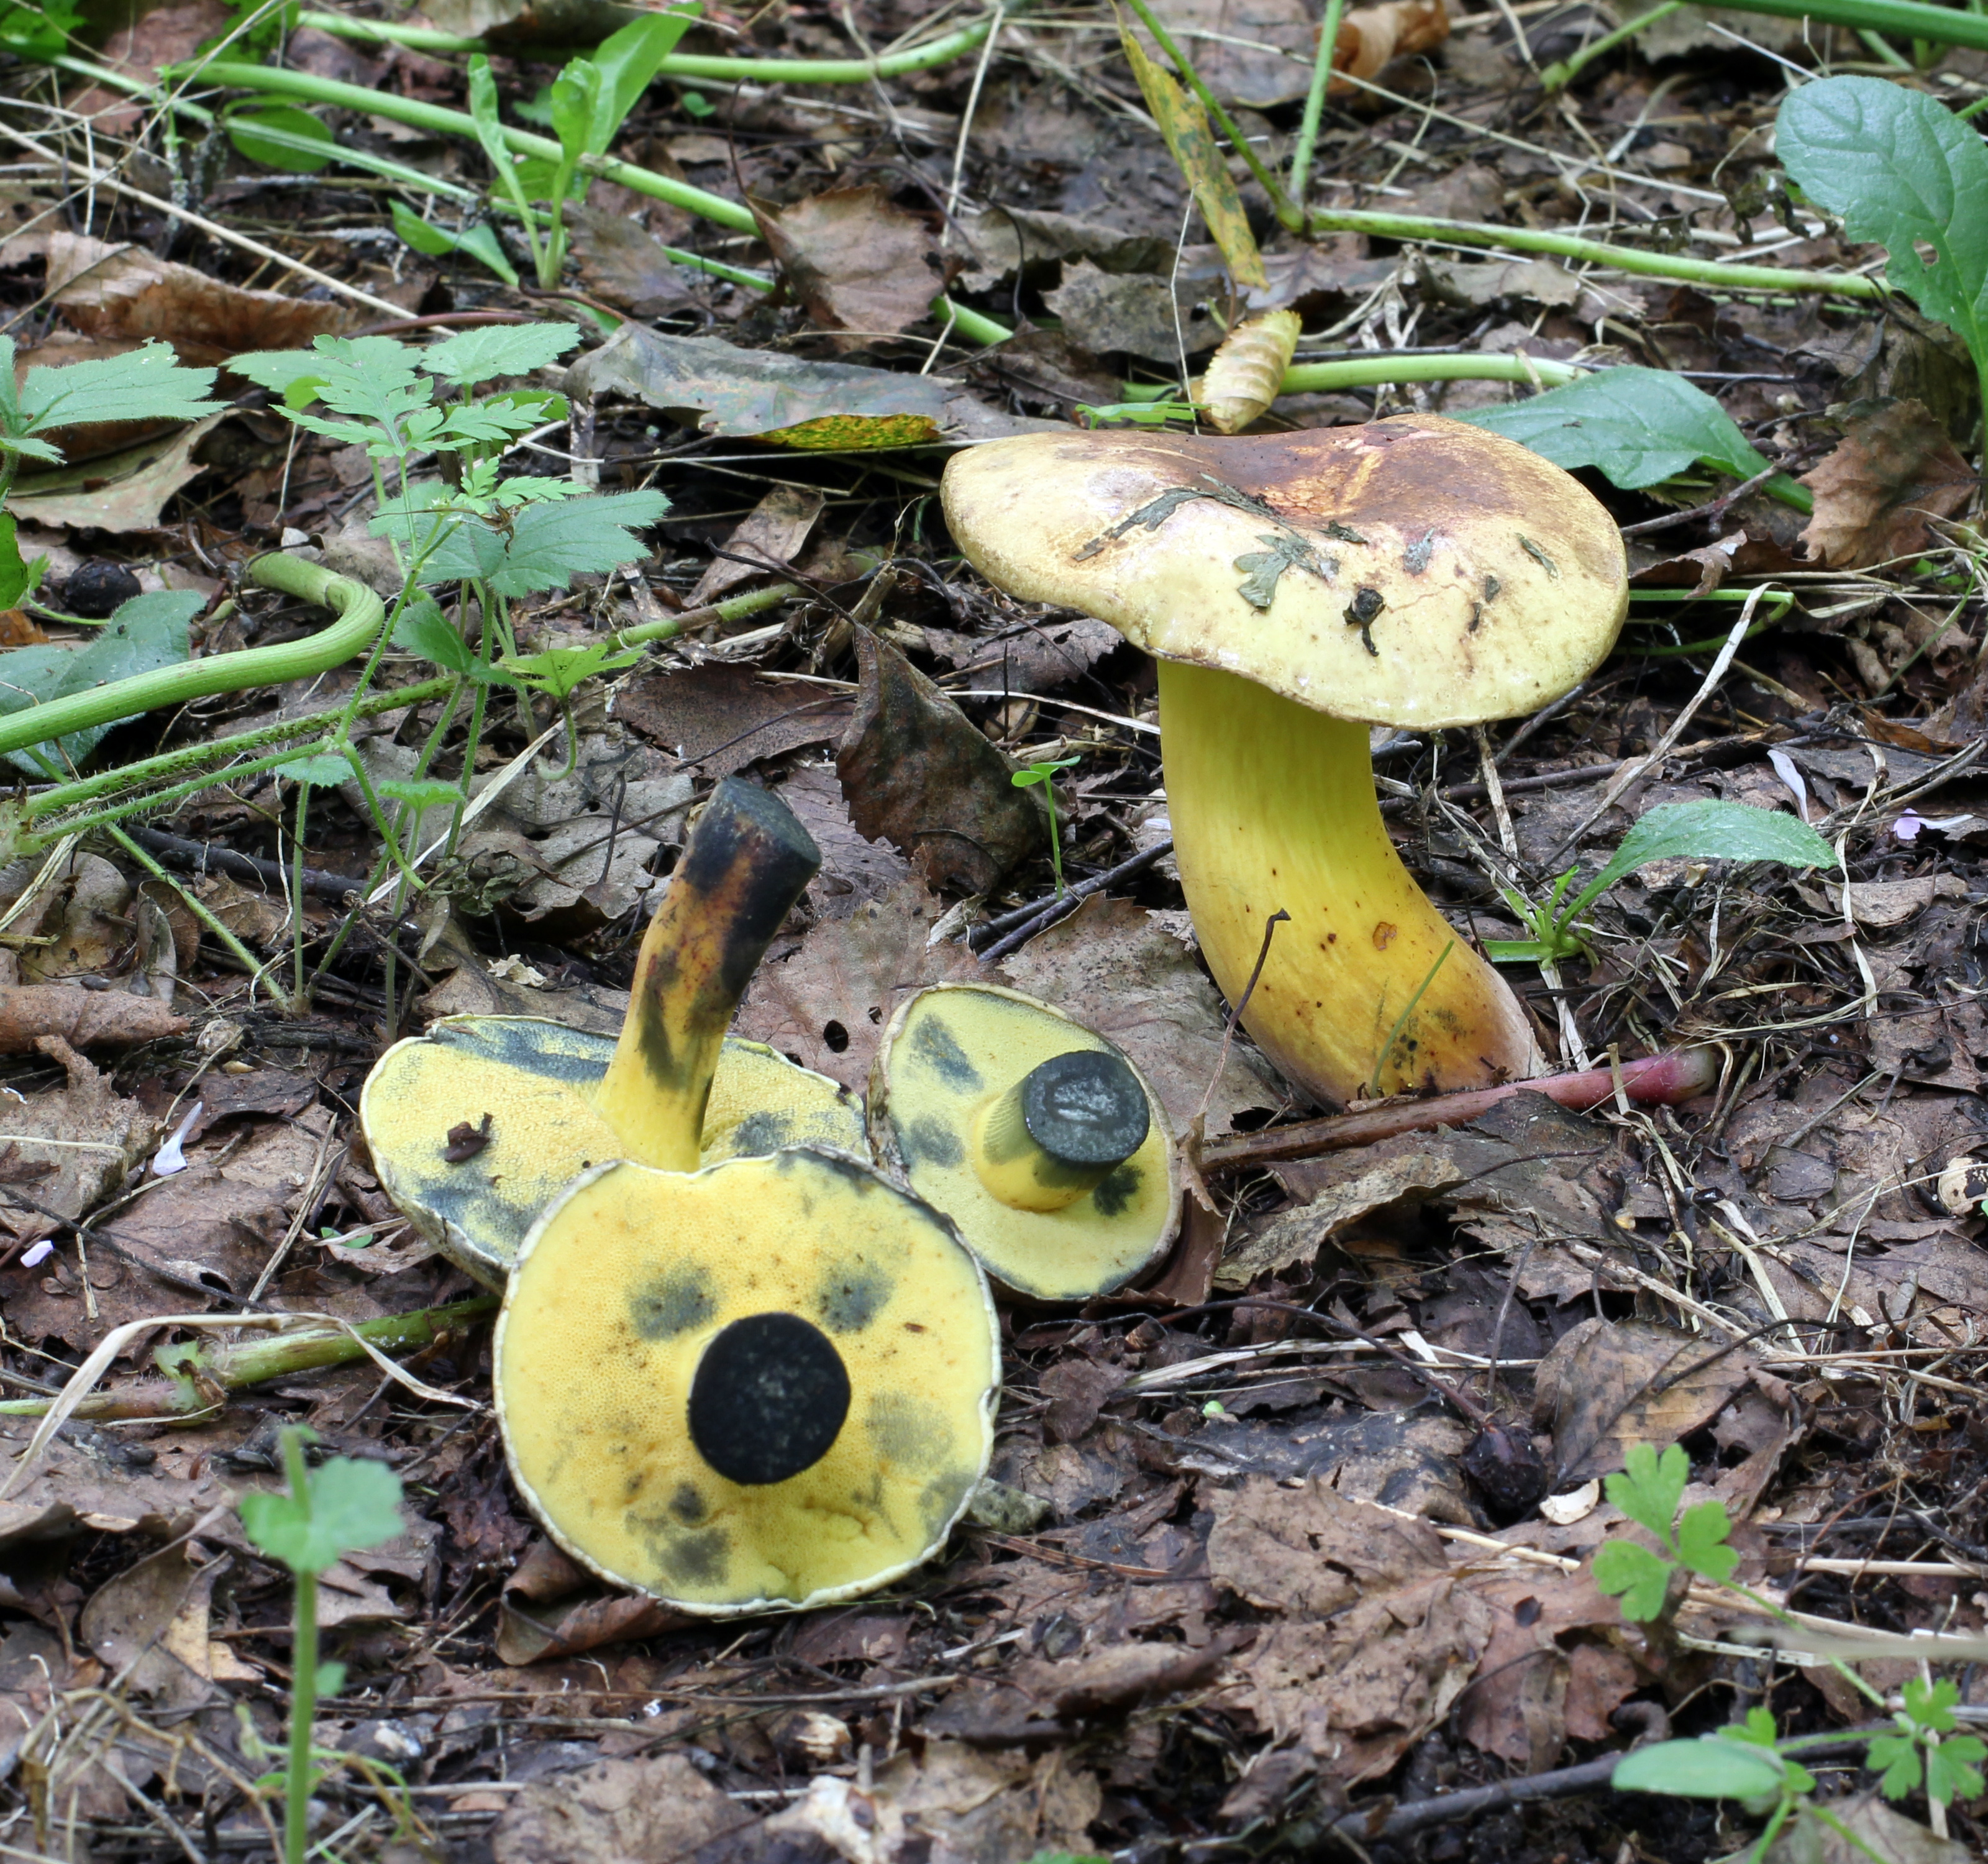
Синьоборовик клиноногий (Cyanoboletus pulverulentus) реагує на дотик і пошкодження негайним, бурхливим та інтенсивним забарвленням усіх частин плодового тіла в глибокий темно-синьо-чорний колір. У Imleria badia посиніння менш рівномірне і концентрується насамперед над трубочками та у верхній частині ніжки.
Tylopilus felleus
Основні відмінності
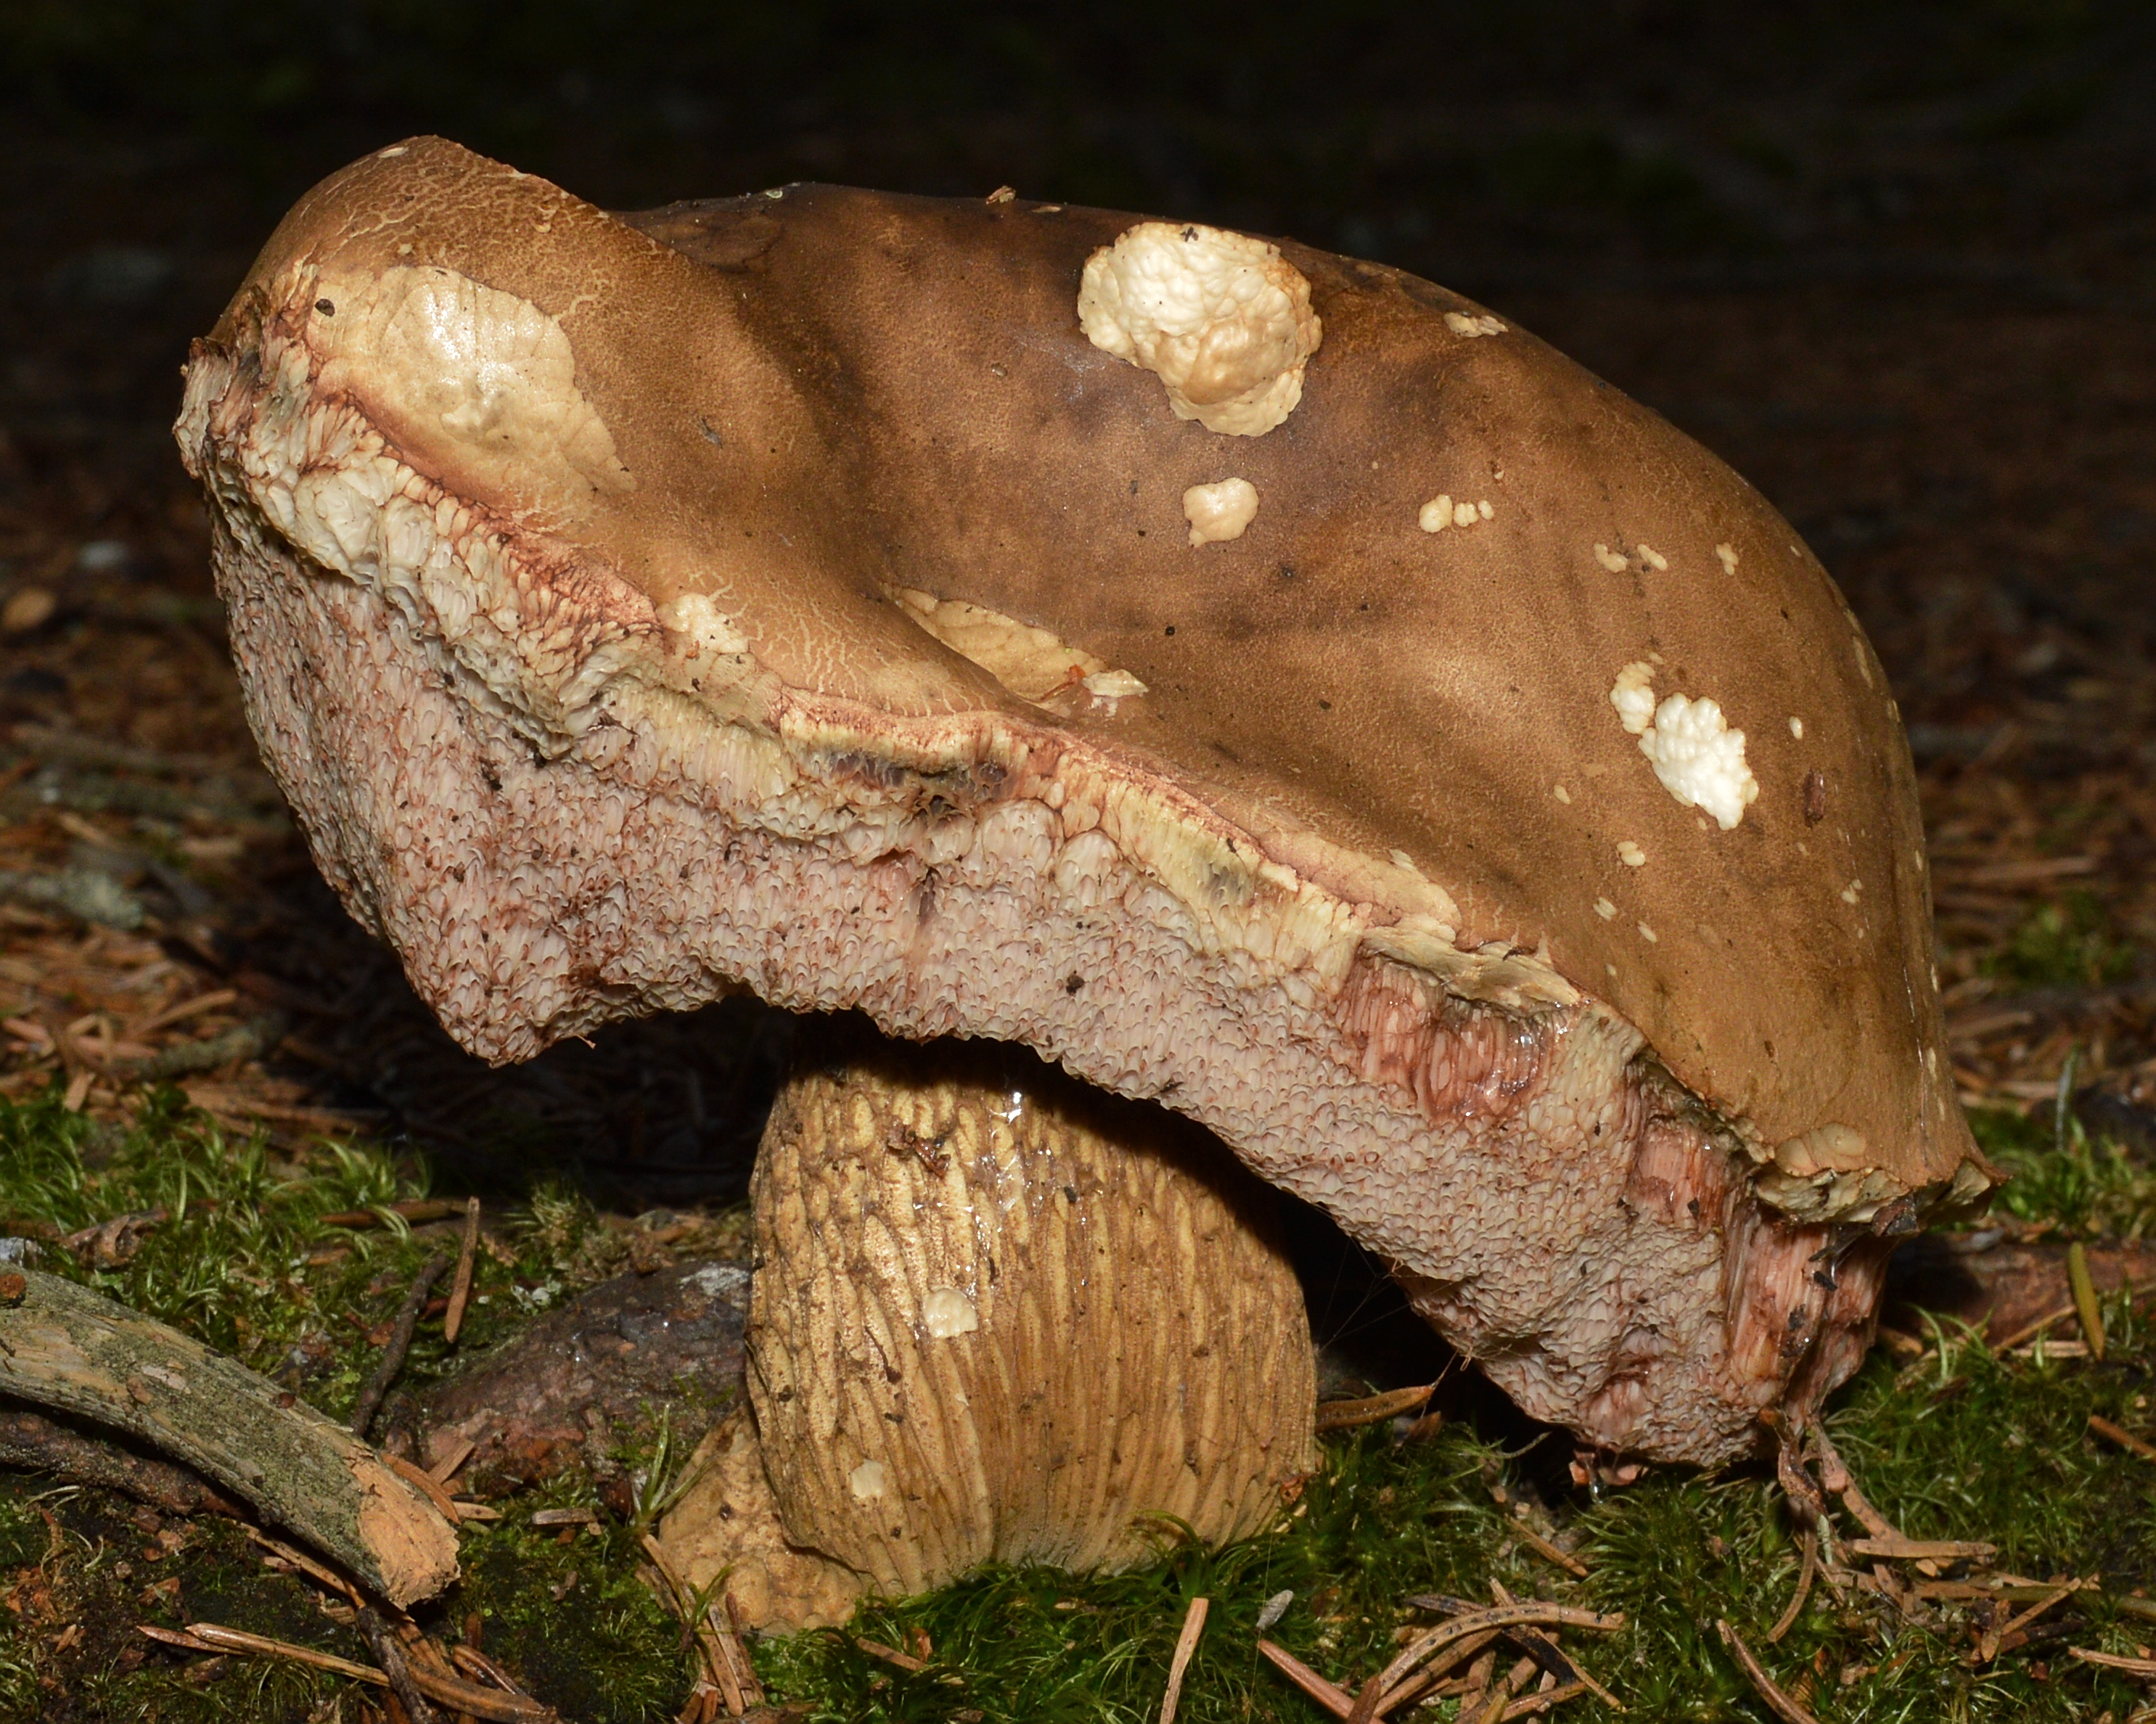
Гірчак жовчний (Tylopilus felleus) має пори й трубочки спочатку білі, а з віком рожевіючі, виразну темну сіточку на ніжці та сильно гіркий смак м'якуша, що робить його неїстівним грибом.
Польський гриб (Imleria badia) іноді плутають із молодими, темнішими плодовими тілами гірчака жовчного. Проте польський гриб має жовтуваті трубочки (у гірчака вони від білих до рожевуватих), а його ніжка позбавлена товстої, темної сітки з опуклими комірками, характерної для гірчака.
Xerocomellus pruinatus
Основні відмінності
Моховичок припорошений (Xerocomellus pruinatus) може нагадувати польський гриб забарвленням шапинки.
FAQ
Як відрізнити польський гриб від гірчака?
Гірчак має виразну темну сіточку на ніжці та трубочки, які з віком рожевіють і не синіють. Польський гриб не має сіточки на ніжці, а його трубочки жовтуваті й після натискання негайно синіють.
Чи синіє польський гриб?
Так. Трубочки після натискання відразу виразно синіють, а м'якуш синіє над трубочками. Це природна реакція окислення барвників; вона не означає дефекту чи отрути і зникає після термічної обробки.
Чи можна вирощувати польський гриб у саду?
На практиці ні. Це гриб суто мікоризний — він потребує живого симбіозу з корінням дерев (переважно сосен). Продавані в магазинах 'садові грибниці' майже ніколи не дають у саду справжнього врожаю.
Де шукати польський гриб?
Насамперед у соснових та ялинових борах, рідше під дубами чи буками. Любить кислі піщані ґрунти, килими зелених мохів та узлісся вересовищ, утворюючи мікоризу з деревами.
Чи підгриб коричневий і підгрибок коричневий — це один і той самий вид?
Так, це один і той самий гриб (Imleria badia). 'Підгриб' — це офіційна мікологічна форма, а 'підгрибок' — традиційна назва грибників. У старих атласах він фігурував як Boletus badius і Xerocomus badius.
Коли росте польський гриб у Польщі?
Пік сезону припадає на осінь: з вересня до кінця жовтня, особливо після рясних дощів і прохолодніших ночей. Перші екземпляри трапляються з червня, а сезон закривають приморозки.
Чи слизька шапинка польського гриба свідчить про псування?
Ні. Під час дощу шкірка польського гриба природно стає клейкою та слизистою, а за посухи вона матова. Про псування свідчить лише губчастий, м'який м'якуш, білий наліт цвілі або затхлий запах.
Любитель
Низ шапинки
- Діаметр пор
- Діаметр пор: 0,5–1,5 mm.
- Довжина трубочок
- Довжина трубочок: до 20 mm.
- Будова пор
- Будова пор: складні (трубочки).
Назви та історія
- Obowiązująca nazwa krajowa
- podgrzyb brunatny
- Obowiązująca nazwa taksonomiczna
- Imleria badia (Fr.) Vizzini
- Inne nazwy krajowe
- czarny łebek, czarny łepek, podgrzyb, podsosnówka
- Dawne nazwy krajowe
- podgrzybek brunatny
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: коричневий.
- Відтінок спорового відбитка
- Відтінок спорового відбитка: оливково-коричневий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Розміри спори
- Довжина 11–18 µm, ширина 4–6 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Проби з реактивами
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, спори зі спорового відбитка, готовий розчин 5% KOH, фільтрувальний папір, захисні окуляри та рукавички для роботи з KOH
- Виконання
- Перенесіть трохи спор зі спорового відбитка на чисте предметне скло.
- Додайте краплю готового розчину 5% KOH і накрийте покривним склом.
- Видаліть надлишок рідини біля краю скла фільтрувальним папером. Розгляньте колір спор під мікроскопом.
Що шукати
- Колір спор у 5% KOH
- бліду оливково-коричневу
Екологія та поширення
- Реакція ґрунту
- Реакція ґрунту: кислий.
- Гранулометричний склад ґрунту
- Гранулометричний склад ґрунту: піщаний.
- Листяні дерева в оточенні
- Листяні дерева в оточенні: дуб.
Листяні дерева в оточенні: вільха.
Листяні дерева в оточенні: каштан їстівний.
Листяні дерева в оточенні: граб.
Листяні дерева в оточенні: бук. - Хвойні дерева в оточенні
- Хвойні дерева в оточенні: ялина.
Хвойні дерева в оточенні: ялиця.
Хвойні дерева в оточенні: сосна.
Хвойні дерева в оточенні: тсуга.
Хвойні дерева в оточенні: псевдотсуги.
Хвойні дерева в оточенні: туї. - Рослини трав’яного ярусу поблизу
- Рослини трав’яного ярусу поблизу: мохи.
- Мікоризні партнери
- тепличний дослід, Шотландія, острів Б'ют, Велика Британія, 2024, плодоношення в природних умовах не підтверджено: Мікоризні партнери: Pinus sylvestris (контрольований дослід).
Загальний зв’язок виду: Мікоризні партнери: Pinus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Picea (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Tsuga (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Fagus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Quercus (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Castanea (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Abies alba (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Pseudotsuga menziesii (загальний перелік партнерів).
Загальний зв’язок виду: Мікоризні партнери: Carpinus betulus (загальний перелік партнерів).
Історія та культура
Польський гриб посідає важливе місце в грибних традиціях Центральної Європи та в історії мікологічної таксономії. У польській народній і регіональній номенклатурі побутували численні традиційні позначення, що стосувалися зовнішнього вигляду плодових тіл, такі як «czarny łepek», «kasztaniak», «grzyb gniady» (пов'язані з темно-коричневим забарвленням шапинки) або «siniak» (пов'язаний із явищем посиніння пошкоджених трубочок і м'якуша).
В історії наукової мікології вид зазнав низки суттєвих класифікаційних змін, що відображають еволюцію систематики трубчастих грибів. Спочатку в 1818 році Еліас Магнус Фріс визначив цей таксон як Boletus castaneus β badius. Згодом протягом багатьох десятиліть у мікологічній літературі він фігурував у роді Xerocomus як Xerocomus badius, куди його включив Едуар-Жан Жільбер у 1931 році. У 2014 році італійський міколог Альфредо Віззіні на основі сучасних молекулярно-філогенетичних досліджень виокремив новий рід Imleria (названий на честь бельгійського дослідника Луї Імлера) і переніс до нього цей таксон під назвою Imleria badia, що підтвердило його відокремлене еволюційне положення в межах родини Boletaceae.
Їстівність і безпека
Польський гриб є цінним їстівним грибом із ніжним, приємним ароматом і м'яким смаком із вираженою лісовою ноткою. Безумовною умовою безпечного вживання цього виду є піддання плодових тіл термічній обробці — відварюванню, смаженню або тушкуванню. Слід наголосити, що сушіння плодових тіл є лише способом заготівлі сировини і не замінює термічної обробки; сушені гриби перед вживанням також необхідно відварити або піддати іншій належній тепловій обробці. Вживання плодових тіл у сирому або недовареному вигляді становить ризик виникнення розладів травлення.
Специфічним і важливим питанням безпеки для здоров'я, пов'язаним із цим видом, є його висока здатність акумулювати радіоактивні елементи та метали. У дослідженнях, опублікованих у 2026 році (Roczniki Państwowego Zakładu Higieny), задокументовано виразне накопичення радіоцезію (цезій-137) у плодових тілах польського гриба, зібраних у забруднених лісових зонах. У зв'язку з цим рекомендується дотримуватися особливої обережності та уникати збирання грибів на територіях з історичним радіоактивним забрудненням. Для споживання також не придатні старі й перезрілі плодові тіла.
Найважливіші речовини та їхня дія
Норбадіон A і цезій
Podgrzybek brunatny zawiera norbadion A – barwnik wykazujący zdolność do silnego wiązania i kumulowania kationów cezu, w tym promieniotwórczego izotopu ¹³⁷Cs. Stopień akumulacji radionuklidów zależy od lokalnego skażenia podłoża i opadu promieniotwórczego na danym stanowisku.
Оселище та зростання
Польський гриб (Imleria badia) вирізняється широким географічним ареалом у Північній півкулі. Згідно з біогеографічною та філогенетичною ревізією (Zhao та ін., 2014), цей вид трапляється в Європі, Північній Америці та, ймовірно, на Далекому Сході Азії.
Цей вид населяє переважно хвойні та мішані ліси, а спорадично зустрічається також у листяних насадженнях. Утворює мікоризні зв'язки з різними видами дерев, зокрема із сосною звичайною, смерекою (ялиною звичайною), модриною, а також буком лісовим і дубами. Потребує проникних ґрунтів із кислою реакцією та низьким умістом карбонату кальцію. Плодові тіла виростають на піщаних ґрунтах, серед товстого шару хвойної підстилки, у куртинах моху, на вересовищах, а також на сильно зіпрілій деревині та трухлявих пнях хвойних порід.
Згідно із задокументованими фенологічними даними для Польщі та Чехії (таблиці PL і CZ), сезон плодоношення польського гриба охоплює період із червня по листопад (місяці VI–XI). Регіональна неоднорідність появи плодових тіл залежить переважно від наявності хвойних і мішаних лісів на бідних, кислих піщаних ґрунтах.
Оселище, регіон і сезон
W Czechach grzyb ten rośnie bardzo licznie od czerwca do listopada, niekiedy do początku zimy, przede wszystkim pod świerkami, a w drzewostanach liściastych głównie pod dębami. Owocniki nie wykazują odporności na mróz.
Gatunek jest szeroko rozprzestrzeniony w Europie i Ameryce Północnej, od nizin po regiel górny i granicę lasu. Jako partnerów mikoryzowych wymienia się drzewa iglaste z rodzajów Abies, Picea, Pinus, Pseudotsuga, Thuja i Tsuga, a także liściaste z rodzajów Alnus, Castanea, Carpinus, Fagus i Quercus. Dane molekularne ITS wskazują również na prawdopodobne występowanie w Azji Wschodniej i Afryce Południowej.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний — źródło oznaczenia
Źródło bez opisu bibliograficznego · Retained UTF-8 HTML, line 554; jadalne czy trujące?
- Кулінарна оцінка
- Дуже смачний
Źródło bez opisu bibliograficznego · Retained windows-1250 HTML, line 129; Kuchyňské využití
- Торгівля
- Дозволений для торгівлі
Obszar: PL
Zał.1 lp.50; pozostałe wymagania aktu, w tym atest, zachowane.
W Polsce jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U.2026 poz.258 · PDF str.2–3: § 2–6; str.5–7: zał.1 lp.1–72; status ELI obowiązujący
Наукові назви та таксономія
- Чинна наукова назва
Imleria badia (Fr.) Vizzini
- Колишні наукові назви
- 1818 — Boletus castaneus β badius Fr.
1821 — Boletus badius (Fr.) Fr.
1828 — Boletus castaneus var. badius (Fr.) Fr.
1836 — Boletus glutinosus Krombh.
1838 [1836–1838] — Boletus vaccinus Fr.
1874 [1874–1875] — Boletus limatulus Frost
1881 — Rostkovites badius (Fr.) P. Karst.
1882 — Tubiporus vaccinus (Fr.) P. Karst.
1882 — Tubiporus vaccinus var. ebulbis Fr. ex P. Karst.
1886 — Dictyopus aereus var. vaccinus (Fr.) Quél.
1886 — Viscipelles badia (Fr.) Quél.
1888 — Ixocomus badius (Fr.) Quél.
1898 — Suillus badius (Fr.) Kuntze
1898 — Suillus limatulus (Frost) Kuntze
1898 — Suillus vaccinus (Fr.) Kuntze
1912 [1911] — Boletus badius var. glutinosus (Krombh.) Smotl.
1931 — Xerocomus badius (Fr.) E.-J. Gilbert
1945 — Xerocomus badius var. limatulus (Frost) Snell
1960 — Xerocomus badius f. labyrinthicus Wichanský
1976 — Boletus badius var. glaber Grund & K.A. Harrison
1976 — Boletus badius var. macrostipitatus Grund & K.A. Harrison
2007 — Xerocomus badius f. vaccinus (Fr.) Klofac
2016 — Imleria badia f. vaccina (Fr.) Klofac
2018 — Imleria badia var. limatula (Frost) Blanco-Dios[23]
Obecnie przyjęta nazwa naukowa to Imleria badia (Fr.) Vizzini. Gatunek należy do rodziny Boletaceae, rzędu Boletales oraz klasy Agaricomycetes. Bazonimem jest Boletus castaneus β badius Fr. z 1818 roku. Alfredo Vizzini utworzył rodzaj Imleria i opublikował nową kombinację 12 maja 2014 roku w Index Fungorum 147; taksonomiczne numery rejestracyjne to odpowiednio 550568 i 550569.
[23] [30] [32]W dawniejszym piśmiennictwie podgrzybek brunatny opisywany był głównie jako Boletus badius oraz Xerocomus badius. Dla nazwy Boletus badius rejestr Species Fungorum podaje rok 1821, rewizja Zhu i współautorów wskazuje 1828, a atlas czeski – 1832, przy czym źródła te wymieniają odmienne publikacje pierwotnego opisu. W przypadku nazwy Imleria badia wszystkie trzy opracowania zgodnie podają autorstwo Vizziniego z 2014 roku. Z kolei przy Boletus castaneus var. badius Species Fungorum podaje rok 1828, natomiast rewizja wskazuje 1821.
[23] [32] [13]Rewizja przeprowadzona przez Zhu i współautorów w 2014 roku wyodrębniła rodzaj Imleria z wąsko ujmowanych rodzajów Xerocomus, Xerocomellus i Boletus. W obrębie Imleria wyróżniono cztery gatunki: Imleria badia, Imleria obscurebrunnea, Imleria parva oraz Imleria subalpina. Dawniejsze chińskie doniesienia pod nazwą Boletus badius odnosiły się do trzech pozostałych gatunków, stąd ich dane morfologiczne i ekologiczne nie dotyczą bezpośrednio podgrzybka brunatnego.
[30] [32]W rewizji filogenetycznej analizowano pięć markerów DNA: ITS, nrLSU, tef1α, rpb1 oraz rpb2. Wielogenowa analiza obejmowała regiony 5.8S, nrLSU, tef1α, rpb1 i rpb2, a region ITS badano również osobno. Łącznie dla badanych taksonów uzyskano 55 nowych sekwencji: 13 ITS, 13 nrLSU, 11 tef1α, 10 rpb1 oraz 8 rpb2.
[32]Wielogenowy zbiór danych obejmował 45 taksonów i 4802 pozycje, natomiast oddzielna analiza ITS liczyła 26 sekwencji i 645 pozycji. Wsparcie dla kladu Imleria wyniosło BS = 100% i PP = 1,0. Średnia odległość genetyczna ITS pomiędzy europejskimi a północnoamerykańskimi kolekcjami Imleria badia wyniosła 0,0026 i była wyraźnie niższa od najmniejszego międzygatunkowego dystansu w rodzaju, wynoszącego 0,0176, co uzasadniło utrzymanie populacji z obu kontynentów w ramach jednego gatunku.
[32]Epityp gatunku stanowi szwedzki okaz zebrany przez A. Strida 28 sierpnia 1993 roku w Nordingrå (A. Strid 19707, S-F119691). Z epitypu uzyskano sekwencje referencyjne o numerach dostępu: ITS KJ806970, nrLSU KJ806971, tef1α KJ806969, rpb1 KJ806972 oraz rpb2 KJ806973.
[32]Pomiary mikroskopowe w rewizji taksonomicznej prowadzono na suchych okazach rehydratowanych w 5% KOH, a ocenę barw struktur mikroskopowych wykonywano w wodzie i w KOH. Skórkę kapelusza badano na promienistych przekrojach pionowych w połowie promienia kapelusza, a łuseczki trzonu pobierano z połowy jego wysokości. Obserwacje ultrastruktury zarodników wykonano w mikroskopie skaningowym Hitachi S4800 przy napięciu 10,0 kV.
[32]Екологія та поширення
Лабораторна діагностика
Dane ustrukturyzowane
Базидії
Каулоцистиди
- Пряжки
- Пряжки: відсутній. [32]
Гіменіальні цистиди
- Оптичний вигляд гіменіальних цистид
- Оптичний вигляд гіменіальних цистид: гіаліновий. [32]
- Розподіл гіменіальних цистид
- Розподіл гіменіальних цистид: розсіяні. [32]
- Довжина спільно описаних гіменіальних цистид
- Довжина спільно описаних гіменіальних цистид: 35–65 µm. [32]
- Форма спільно описаних гіменіальних цистид
- Форма спільно описаних гіменіальних цистид: ланцетоподібні, майже веретеноподібні з коротким вістрям або череватий. [32]
- Товщина стінки спільно описаних гіменіальних цистид
- Товщина стінки спільно описаних гіменіальних цистид: тонкостінний. [32]
- Ширина спільно описаних гіменіальних цистид
- Ширина спільно описаних гіменіальних цистид: 6–10 µm. [32]
Мікориза
- Розгалуження мікоризи
- Розгалуження мікоризи: дихотомічне або нерозгалужені. [29]
- Довжина мікоризи
- Довжина мікоризи: 2–10 mm. [29]
- Рясність відхідних гіф мікоризи
- Рясність відхідних гіф мікоризи: нечисленні. [29]
- Будова сітки Гартіга
- Будова сітки Гартіга: типу Palmetti. [29]
- Вигляд мантії мікоризи
- Вигляд мантії мікоризи: сріблястий. [29]
- Будова мантії мікоризи
- Будова мантії мікоризи: плектенхіматична. [29]
- Рельєф поверхні мантії мікоризи
- Рельєф поверхні мантії мікоризи: гладенький. [29]
- Колір ризоморф мікоризи
- Колір ризоморф мікоризи: білуватий. [29]
- Наявність ризоморф мікоризи
- Наявність ризоморф мікоризи: наявний. [29]
Шкірка шапинки
- Забарвлення гіф шкірки шапинки
- Забарвлення гіф шкірки шапинки: жовтуваті. [32]
- Інкрустація гіф шкірки
- Інкрустація гіф шкірки: наявний. [32]
- Занурення гіф шкірки в драглисту речовину
- Занурення гіф шкірки в драглисту речовину: наявний. [32]
- Колір пігменту шкірки
- Колір пігменту шкірки: жовто-коричневою. [32]
- Будова шкірки шапинки
- у молодих плодових тіл: Будова шкірки шапинки: іксотриходерма. [32]
у зрілих плодових тіл: Будова шкірки шапинки: переплетена іксотриходерма. [32] - Форма верхівки кінцевої клітини шкірки шапинки
- Форма верхівки кінцевої клітини шкірки шапинки: заокруглений. [32]
Форма верхівки кінцевої клітини шкірки шапинки: звужується. [32] - Довжина кінцевої клітини шкірки шапинки
- Довжина кінцевої клітини шкірки шапинки: 30–60 µm. [32]
- Форма кінцевої клітини шкірки шапинки
- Форма кінцевої клітини шкірки шапинки: циліндричний. [32]
- Ширина кінцевої клітини шкірки шапинки
- Ширина кінцевої клітини шкірки шапинки: 4–7 µm. [32]
Реакції з реактивами
Послідовності ДНК
- Послідовність
- Imleria badia; ITS; KJ806970; S-F119691(epitype)
- Послідовність
- Imleria badia; nrLSU; KJ806971; S-F119691(epitype)
- Послідовність
- Imleria badia; tef1alpha; KJ806969; S-F119691(epitype)
- Послідовність
- Imleria badia; rpb1; KJ806972; S-F119691(epitype)
- Послідовність
- Imleria badia; rpb2; KJ806973; S-F119691(epitype)
- Послідовність
- Imleria badia; rDNA58S; KC215204; HKAS53502
- Послідовність
- Imleria badia; nrLSU; KC215213; HKAS53502
- Послідовність
- Imleria badia; tef1alpha; KC215247; HKAS53502
- Послідовність
- Imleria badia; rpb1; KC215226; HKAS53502
- Послідовність
- Imleria badia; rpb2; KC215235; HKAS53502
- Послідовність
- Imleria badia; nrLSU; KC215212; HKAS74714
- Послідовність
- Imleria badia; tef1alpha; KC215242; HKAS74714
- Послідовність
- Imleria badia; rpb1; KC215224; HKAS74714
Спори
- Колір спор під мікроскопом
- Колір спор під мікроскопом: майже гіалінові. [32]
- Краплі всередині спори
- Краплі всередині спори: 1–2. [32]
- Довжина спори
- Довжина спори: 11–18 µm. [24]
Довжина спори: 11–17,5 µm. [32]
Довжина спори: 12–16 µm. [13] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 2,3–4,2. [32]
- Форма спори
- Форма спори: майже веретеноподібний. [32]
Форма спори: еліпсоїдний. [32]
Форма спори: видовжено-еліпсоїдний. [32] - Поверхня спори
- Поверхня спори: гладенький. [32]
- Товщина стінки спори
- Товщина стінки спори: 0,5 µm. [32]
Трама гіменофора
Матеріал і методи досліджень
Найважливіші речовини та їхня дія
Próbki marynat odsączono, zamrożono, poddano liofilizacji i rozdrobnieniu, a bezpośrednio przed pomiarem suszono sublimacyjnie przez trzy dni. Aktywność gamma mierzono spektrometrem z detektorem germanowym HPGe o wydajności względnej 18% i rozdzielczości 1,9 keV przy energii 1,332 MeV. Wyniki przeliczono na moment pobrania próbek, a zawartość potasu obliczono na podstawie aktywności ⁴⁰K.
[22]- Результати, наведені в джерелах — Довжина спори
- Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 12–16 µm; zakres pomiaru: korpus [13]
Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć długość od 11 do 17,5 mikrometra. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 11–18 µm; zakres pomiaru: korpus [24] - Результати, наведені в джерелах — Ширина спори
- Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć szerokość od 3,5 do 5 mikrometrów. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4,5–6 µm; zakres pomiaru: korpus [24]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4–5,5 µm; zakres pomiaru: korpus [13]
Metody i zapisy źródłowe — Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera.
Stan materiału: ponownie nawodniony.
Pochodzenie materiału: Badane europejskie kolekcje rewizji SE/DE/IT; nie wynik z Polski..
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia 25–48 × 8–14 μm, clavate, 4-spored.” [32]
Kształt podstawki — zapis źródłowy: „clavate” [32]
Układ kaulocystyd — zapis źródłowy: „caespitose” [32]
Długość kaulocystyd; Szerokość kaulocystyd — zapis źródłowy: „Caulocystidia 29–65 × 5–9 μm” [32]
Kształt kaulocystyd — zapis źródłowy: „clavate, ventricose” [32]
Wygląd optyczny cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia ... hyaline when young” [32]
Rozmieszczenie cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered” [32]
Długość wspólnie opisanych cystyd hymenialnych; Szerokość wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered, 35–65 × 6–10 μm” [32]
Kształt wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „lanceolate to subfusoid-mucronate or ventricose” [32]
Grubość ściany wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „thin-walled” [32]
Barwa strzępek skórki kapelusza — zapis źródłowy: „yellowish interwoven hyphae” [32]
Inkrustacja strzępek skórki — zapis źródłowy: „slightly incrusted by yellow-brown (4B8) pigment” [32]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „embedded in gelatinous substance” [32]
Barwa pigmentu skórki — zapis źródłowy: „yellow-brown (4B8) pigments” [32]
Organizacja skórki kapelusza — zapis źródłowy: „ixotrichoderm in youth” [32]
Organizacja skórki kapelusza — zapis źródłowy: „becoming an ixo-intricate-trichoderm when mature” [32]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „terminal cells cylindrical with rounded to tapering apex, 30–60 × 4–7μm.” [32]
Barwa zarodnika w mikroskopie — zapis źródłowy: „nearly hyaline to pale olivaceous brown (2B6) in 5% KOH” [32]
Krople wewnątrz zarodnika — zapis źródłowy: „Jedna lub dwie krople w dojrzałych zarodnikach.” [32]
Długość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; długość 11–15(17,5) µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = (2,3)2,5–3,6(4,2); Qm = 3,0 ± 0,33 (średnia ± odchylenie standardowe); 160 zarodników / 8 owocników / 5 kolekcji.” [32]
Kształt zarodnika — zapis źródłowy: „Boletoidalne: z boku niemal wrzecionowate, od czoła elipsoidalne do podłużnych.” [32]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie pod mikroskopem świetlnym i skaningowym.” [32]
Grubość ściany zarodnika — zapis źródłowy: „Ściana nieco pogrubiała, około 0,5 µm.” [32]
Szerokość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; szerokość (3,5)4–5 µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji.
Typ tramy hymenoforu — zapis źródłowy: „Gatunkowa uwaga na s. 33: Boletus badius ma prawdziwie boletoidalną tramę hymenoforu; terminologia na s. 3–4 zalicza ten podtyp do tramy bilateralnej.” [27]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji. Lista badanego materiału gatunku na s. 34: JŠ 373, 395, 1814, 1856, 1858, 1875, 1931–32, 1980–81, 2102–03, 3089, 3116, 3120, 3223–25, 4299. Zachowana jako kontekst publikacji, bez wyboru vouchera ani wyliczania N.
Typ tramy hymenoforu — zapis źródłowy: „Na s. 31 B. badius jest wymieniony wprost wśród taksonów z prawdziwie boletoidalną tramą. Wcześniejsza wspólna fraza o B. badius i B. moravicus dopuszcza wygląd boletoidalny lub prawie boletoidalny.” [28]
Metody i zapisy źródłowe — Controlled Imleria badia–Pinus sylvestris mycorrhizal experiment, Bute, Scotland
Pochodzenie materiału: Isle of Bute, Scotland, GB.
Rozgałęzienie mikoryzy — zapis źródłowy: „dichotomous ramification pattern or ramification was absent” [29]
Długość mikoryzy — zapis źródłowy: „2 mm to 10 mm” [29]
Obfitość strzępek wychodzących mikoryzy — zapis źródłowy: „infrequent emanating hyphae” [29]
Wzór sieci Hartiga mikoryzy — zapis źródłowy: „Palmetti-type pattern” [29]
Wygląd płaszczyka mikoryzy — zapis źródłowy: „The mantle was either silvery or smooth” [29]
Organizacja płaszczyka mikoryzy — zapis źródłowy: „plectenchymatous organisation” [29]
Relief powierzchni płaszczyka mikoryzy — zapis źródłowy: „either silvery or smooth” [29]
Barwa ryzomorf mikoryzy — zapis źródłowy: „whitish rhizomorphs” [29]
Obecność ryzomorf mikoryzy — zapis źródłowy: „Rhizomorphs were present” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „younger unramified ends whitish” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „older unramified ends ochre, yellowish-brown or whitish” [29]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; długość 11–18 µm, n i protokół niepodane.” [24]
Szerokość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; szerokość 4,5–6 µm, n i protokół niepodane.” [24]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; długość 12–16 µm, n i protokół niepodane.” [13]
Szerokość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; szerokość 4–5,5 µm, n i protokół niepodane.” [13]
Перевірка поширення — обсяг і обмеження
Materiał: Pierwotne kolekcje autora atlasu z Dolnego Śląska.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Підготовка матеріалу для мікроскопії
- Materiał suszony, ponownie nawodniony. Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Materiał ponownie nawodniony. [32]
Protokół dla opisanych obserwacji: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Обсяг опрацювання
Перед завершенням запис потребує доповнення або перевірки.
- Пошук регіонів поширення потребує розрахунку.
- Зв'язки попередніх висновків потребують повторної перевірки.
- Нові джерела вимагають обліку інформації, виявленої під час огляду.
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Найважливіші речовини та їхня дія
W badaniach biochemicznych Gąseckiej i współpracowników (2017) oceniano profil metali, kwasów fenolowych oraz flawonoidów w owocnikach Imleria badia ze stanowisk o różnym stopniu zanieczyszczenia antropogenicznego. Z kolei Sotek i współpracownicy (2025) badali związki bioaktywne, zdolności antyoksydacyjne oraz zawartość pierwiastków śladowych w trzech gatunkach grzybów, w tym u podgrzybka brunatnego.
[18] [26]Аналітичні результати
Imleria badia; роздрібні мариновані гриби без маринаду; Gdańsk; 2016; суха маса
Imleria badia; роздрібні мариновані гриби без маринаду; Gdańsk; 2016; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 27000 ± 1100 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 2700 ± 110 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 12000 ± 1800 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 1200 ± 180 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → висушені; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 21000 ± 1400 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → висушені#; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 2100 ± 140 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 14000 ± 2200 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 2700 ± 1000 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 3200 ± 1800 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 320 ± 180 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 1500 ± 800 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 150 ± 80 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → висушені (до порошку) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 2500 ± 1400 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → висушені (розмелені) → мацеровані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
- total K
- 250 ± 140 mg/kg; розрахунок авторів; у перерахунку на вологу масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → глибоко заморожені → бланшовані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 8800 ± 1200 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; шапинки; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; ніжки; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі плодові тіла; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; волога маса
Boletus edulis; об’єднаний експериментальний матеріал; цілі гриби; свіжі → глибоко заморожені → бланшовані → мариновані; околиці села Осєк у Тухольських борах, північ центральної Польщі; 2015; суха маса
- total K
- 3200 ± 850 mg/kg; розрахунок авторів; у перерахунку на суху масу.[22]
Boletus edulis; роздрібні мариновані гриби без маринаду; промислово мариновані й відціджені; Gdańsk; 2016; суха маса
Boletus edulis; роздрібні мариновані гриби без маринаду; промислово мариновані й відціджені; Gdańsk; 2016; волога маса
Екологічні дослідження
Оселище, регіон і сезон
Doświadczenie szklarniowe przeprowadzone na wyspie Bute w Szkocji potwierdziło tworzenie mikoryzy przez Imleria badia na siewkach sosny zwyczajnej (Pinus sylvestris). Nasiona wysiano 20 kwietnia 2024 roku, inokulację przeprowadzono 30 lipca, a ocenę systemu korzeniowego wykonano w listopadzie. Doświadczenie obejmowało 20 siewek w każdym wariancie (do szczegółowej analizy losowano po 10), hodowanych na sterylizowanym podłożu torf–perlit–wermikulit (1:1:1), przy użyciu pojedynczego izolatu oraz trzech metod zakażania: grzybnią, zarodnikami oraz metodą łączoną.
[29]W próbach inokulacji grzybniowej stosowano wycinek agaru o powierzchni 1 cm², natomiast w wariancie zarodnikowym dawkę odpowiadającą około 0,25 g wysuszonego kapelusza na roślinę. Ocenę korzeni prowadzono na trzech poziomach głębokości (0–4 cm, 4–8 cm i 8–12 cm), analizując po trzy losowe fragmenty korzeni z każdej strefy pod mikroskopem stereoskopowym i świetlnym, z barwieniem błękitem bawełnianym w laktofenolu.
[29]Wytworzone ektomikoryzy miały długość 2–10 mm, były nierozgałęzione lub widlasto (dichotomicznie) rozgałęzione. Młode struktury były białawe, starsze ochrowe do żółtobrązowych. Obserwowano białawe ryzomorfy, gładki lub srebrzysty mufkowaty płaszczyk o budowie plektenchymatycznej oraz sieć Hartiga typu Palmetti. W strzępkach i ryzomorfach nie stwierdzono sprzążek. Tożsamość grzyba potwierdzono testem PCR specyficznym dla Imleria badia (produkt o długości 151 par zasad) w 9 niezależnych mikoryzach; korzenie kontrolne dały wynik negatywny.
[29]Średni wskaźnik kolonizacji korzeni wyniósł 7,8% dla grzybni, 4,3% dla zawiesiny zarodników oraz 7,16% dla metody łączonej. Na poszczególnych głębokościach (0–4 cm, 4–8 cm, 8–12 cm) wartości te kształtowały się odpowiednio: 11,7%, 6,3% i 5,4% przy inokulacji grzybnią; 3,3%, 6,4% i 3,2% przy inokulacji zarodnikami; 7,0%, 9,1% i 5,2% przy zastosowaniu obu metod. W grupie kontrolnej nie wykryto mikoryz Imleria badia, a sporadyczna obecność innego grzyba wyniosła średnio 1,11%, 1,33% i 0,89% (łącznie około 1%).
[29]Test Kruskala–Wallisa wykazał statystycznie istotną różnicę pomiędzy grupami inokulowanymi a kontrolą (χ² = 26,77, df = 3, p = 6,57 × 10⁻⁶). Testy Wilcoxona z poprawką Bonferroniego potwierdziły istotną kolonizację względem kontroli dla inokulum grzybniowego (p = 4 × 10⁻⁶), metody łączonej (p = 0,00077) oraz zarodników (p = 0,00031). Pomiędzy samymi metodami inokulacji nie stwierdzono istotnych różnic statystycznych (p > 0,05). Podobnie głębokość podłoża nie wpływała istotnie na poziom kolonizacji (p = 0,3497, 0,3668 i 0,9994).
[29]Czysta kultura jednego z izolatów tworzyła zaczątki owocników (primordia) na pożywkach MMN i PDA po przeniesieniu z inkubatora o temperaturze 23 °C do warunków laboratoryjnych o temperaturze 14–18 °C na okres kilku tygodni. Badania te dotyczą wczesnych etapów formowania mikoryzy i zawiązków, nie stanowiąc metody komercyjnej uprawy owocników.
[29]Analiza biogeograficzna oparta na bazie danych GBIF objęła 69 737 globalnych rekordów występowania Imleria badia i jej synonimów, z których wyselekcjonowano 34 151 rekordów europejskich zgromadzonych w latach 1970–2024 (1970–2025). Dane te reprezentują zgłoszenia obecności gatunku na stanowiskach.
[29]Оселище та зростання
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Джерела |
|---|---|---|---|
| Чехія | Nie ustalono regionów w zapisanych danych | VI–XI |
|
| Польща | Нижня Сілезія (територія, зазначена в джерелі) | VI–XI |
|
Матеріали
Документація досліджень
- Мікроскопія
- src-cms-badia[13]
- Опис смаку
- src-coford 2008-badia[14]
- Кількісний аналіз
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7[22]
- Мікроскопія
- src-snowarski-badia[24]
- Мікроскопія
- src-sutara 2005[27]
- Мікроскопія
- src-thomas 2026[29]
- Проби з реактивами
- Проби з реактивами
- Проби з реактивами
- Проби з реактивами
- Дослідження пряжок
- src-zhu 2014[32]
- Мікроскопія
- src-zhu 2014[32]
- Філогенетичне дослідження
- src-zhu 2014[32]
Гербарні колекції
- S-F119691(epitype)
Швеція; Angermanland,Nordingra; 1993-08-28; A.Strid19707
[32]- HKAS74714
Німеччина; Marburg; 2006-12-04; Z.L.YangM3
[32]- HKAS53502
Німеччина; Marburg; 2006-11-24; L.Wang4
[32]- HKAS74713
Італія; Lazio,CaldaradiManziana/Rome; 2010-11-25; M.GelardiMG396a; 265 м над рівнем моря
[32]- HKAS75797
Італія; Lombardy,Cevo/Brescia; 2012-08-20; M.GelardiMG463a; 1750 м над рівнем моря
[32]
Джерела
- Weryfikacja strukturalnych polskich wyników prawnych, 17.10.2026
- src-cms-badia
- src-coford 2008-badia
- ELI: protection
- ELI: trade
- src-gasecka 2017-access
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7
- src-sf-badia
- src-snowarski-badia
- src-sotek 2025-access
- src-sutara 2005
- src-sutara 2008
- src-thomas 2026
- src-vizzini 2014
- src-zhu 2014