
Ядомы

Дазволены да абароту
Вызначце месцазнаходжанне, каб убачыць даныя для свайго рэгіёна.


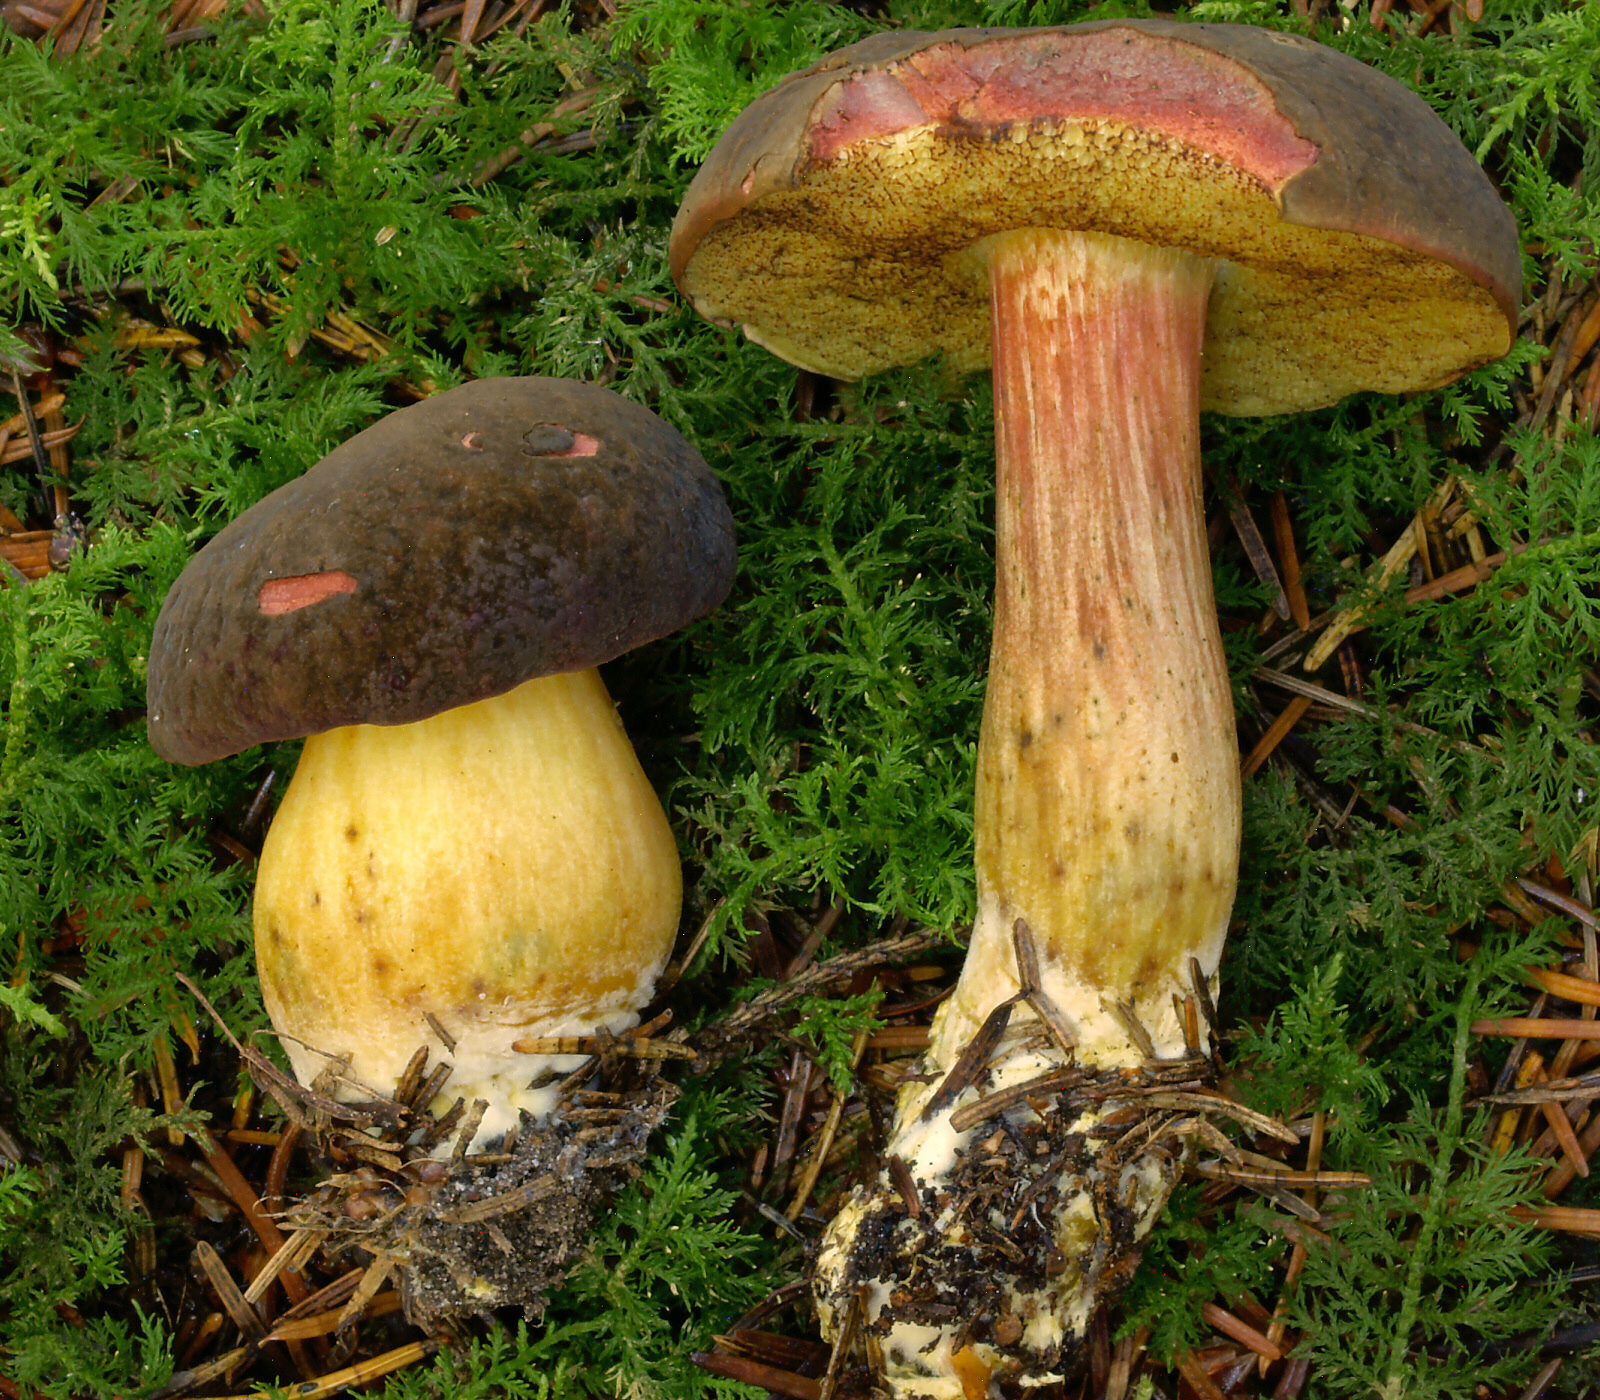
Падгрыб карычневы (Imleria badia), вядомы таксама як падгрыбак карычневы, з'яўляецца звычайным і цэнным грыбам польскіх лясоў. Яго каштанавая або цёмна-карычневая шапка ў сухім стане матавая і аксаміцістая, а падчас вільготнага надвор'я становіцца слізкай. Жаўтаваты ніжні бок шапкі сінее пры націсканні. Ножка карычняватая, падоўжна-валакністая і пазбаўленая сетачкі. Яго можна сустрэць у іглічных і лісцевых лясах, часта па суседстве з соснамі і елкамі. Пладовыя целы з'яўляюцца з лета, найбольш масава — восенню. Гэта вельмі смачны ядомы грыб, які ахвотна збіраюць для сушкі, смажання і марынавання.
Распазнаванне, месцапражыванне і найважнейшыя адрозненні.
Грыбнік
Будова пладовага цела
- Тып будовы пладовага цела
- Тып будовы пладовага цела: Шапка, ножка.
- Кансістэнцыя ўсяго пладовага цела
- Кансістэнцыя ўсяго пладовага цела: мясісты.
- Афарбоўка міцэлію каля асновы пладовага цела
- Афарбоўка міцэлію каля асновы пладовага цела: белаватая або крэмавы.
Шапка
- Форма капялюшыка
- у маладых пладовых цел: Форма капялюшыка: паўшарападобны.
у спелых пладовых цел: Форма капялюшыка: выпуклы.
у старых пладовых цел: Форма капялюшыка: плоскі. - Паверхня капялюшыка
- у сухім стане: Паверхня капялюшыка: матавы, аксамітны.
у мокрым стане: Паверхня капялюшыка: слізісты.
у мокрым стане: Паверхня капялюшыка: бліскучы. - Покрыва капялюшыка
- у сухім стане: Покрыва капялюшыка: лямцаватая або шматкаватая.
- Колер капялюшыка
- Колер капялюшыка: залаціста-карычневы.
Колер капялюшыка: светла-карычневы.
Колер капялюшыка: іржавага колеру.
Колер капялюшыка: каштанавы.
у спелых пладовых цел: Колер капялюшыка: палева-карычневы.
Колер капялюшыка: цёмна-карычневы. - Размяшчэнне краю
- у маладых пладовых цел: Размяшчэнне краю: падгорнуты ўнутр.
- Выступ краю капялюшыка за гіменафар
- Выступ краю капялюшыка за гіменафар: выступае за гіменафар.
- Дыяметр капялюшыка
- Дыяметр капялюшыка складае 30–250 mm.
Ніз шапкі
- Тып гіменафора
- Тып гіменафора: трубачкі.
Трубачкі каля ножкі
- Прымацаванне гіменафора да ножкі
- Прымацаванне гіменафора да ножкі: прырослы да ножкі (трубачкі).
- Профіль гіменафора каля ножкі
- Профіль гіменафора каля ножкі: выемчаты каля ножкі (трубачкі).
- Паглыбленне слоя трубачак ля ножкі
- Паглыбленне слоя трубачак ля ножкі: паглыбленая ля ножкі.
- Колер гіменафора
- у маладых пладовых цел: Колер гіменафора: крэмавы.
у спелых пладовых цел: Колер гіменафора: цьмяна-жоўтая.
у маладых пладовых цел: Колер гіменафора: бледна-цытрынава-жоўтая. - Форма пор
- у спелых пладовых цел: Форма пор: няправільны.
Форма пор: вуглаватыя. - Колер пор пасля пашкоджання
- Колер пор пасля пашкоджання: сіні.
Колер пор пасля пашкоджання: Сіне-зялёны.
Колер пор пасля пашкоджання: цьмяна-карычневая. - Натуральны колер пор
- Натуральны колер пор: светла-жоўты.
- Натуральны колер трубачак
- Натуральны колер трубачак: светла-жоўты.
Натуральны колер трубачак: аліўкава-зялёна-жоўтая.
Ножка і аснова
- Становішча ножкі
- Становішча ножкі: цэнтральны.
- Форма ножкі
- Форма ножкі: цыліндрычны.
Форма ножкі: булавападобны.
у маладых пладовых цел: Форма ножкі: бочкападобны.
у спелых пладовых цел: Форма ножкі: цыліндрычны.
у маладых пладовых цел: Форма ножкі: цыліндрычны.
у спелых пладовых цел: Форма ножкі: булавападобны. - Колер ножкі
- Колер ножкі: карычневы.
Колер ножкі: палева-карычневы. - Покрыва паверхні ножкі
- Покрыва паверхні ножкі: валакністая.
Покрыва паверхні ножкі: валакністая або шматкаватая.
Покрыва паверхні ножкі: лускаватая. - Колер арнаментацыі ножкі
- Колер арнаментацыі ножкі: карычневы.
Колер арнаментацыі ножкі: вохрыста-карычневы. - Унутраная будова ножкі
- Унутраная будова ножкі: суцэльны.
- Кансістэнцыя ножкі
- у спелых пладовых цел: Кансістэнцыя ножкі: здраўнелы.
- Даўжыня ножкі
- Даўжыня ножкі: 30–140 mm.
- Дыяметр ножкі
- Дыяметр ножкі: 10–50 mm.
- Выгіб ножкі
- Выгіб ножкі: выгнуты.
Мякаць
- Колер мякаці
- Колер мякаці: крэмавы або лімонна-жоўты (мякаць капялюшыка).
Колер мякаці: крэмавы або лімонна-жоўты (мякаць ножкі).
Колер мякаці: светла-жоўты.
Колер мякаці: карычняваты (мякаць капялюшыка, пад скуркай). - Шчыльнасць мякаці
- у маладых пладовых цел: Шчыльнасць мякаці: шчыльны.
у спелых пладовых цел: Шчыльнасць мякаці: мяккі (мякаць капялюшыка). - Смак мякаці
- Смак мякаці: салодкі, слабы.
Смак мякаці: слабы. - Колер мякаці пасля пашкоджання
- Колер мякаці пасля пашкоджання: сіні (мякаць капялюшыка).
у верхняй частцы ножкі: Колер мякаці пасля пашкоджання: сіні (мякаць ножкі).
Колер мякаці пасля пашкоджання: сіні. - Пах мякаці
- Пах мякаці: грыбны.
Пах мякаці: слабы.
Дзе і калі расце
- Месцапражыванне
- Месцапражыванне: хвойны лес або лісцевы лес.
- Субстрат
- Субстрат: глеба.
- Характар росту пладовых цел
- Характар росту пладовых цел: паасобку або невялікімі групамі.
Характар росту пладовых цел: групамі. - Частата знаходак
- Частата знаходак: звычайны.
- Перыяд плоданашэння
- Пладовыя целы з’яўляюцца з чэрвеня да лістапада.
Пладовыя целы з’яўляюцца пераважна з верасня да лістапада. - Арэал распаўсюджання
Ядомасць і кулінарыя
- Ядомасць
- Ядомы
- Кулінарная ацэнка
- Вельмі смачны
Права
Правілы для лакацыі: Польшча
- Ахова
- У Польшчы від не падлягае відавой ахове.
- Гандаль
- Дазволены да абароту
З чым можна паблытаць
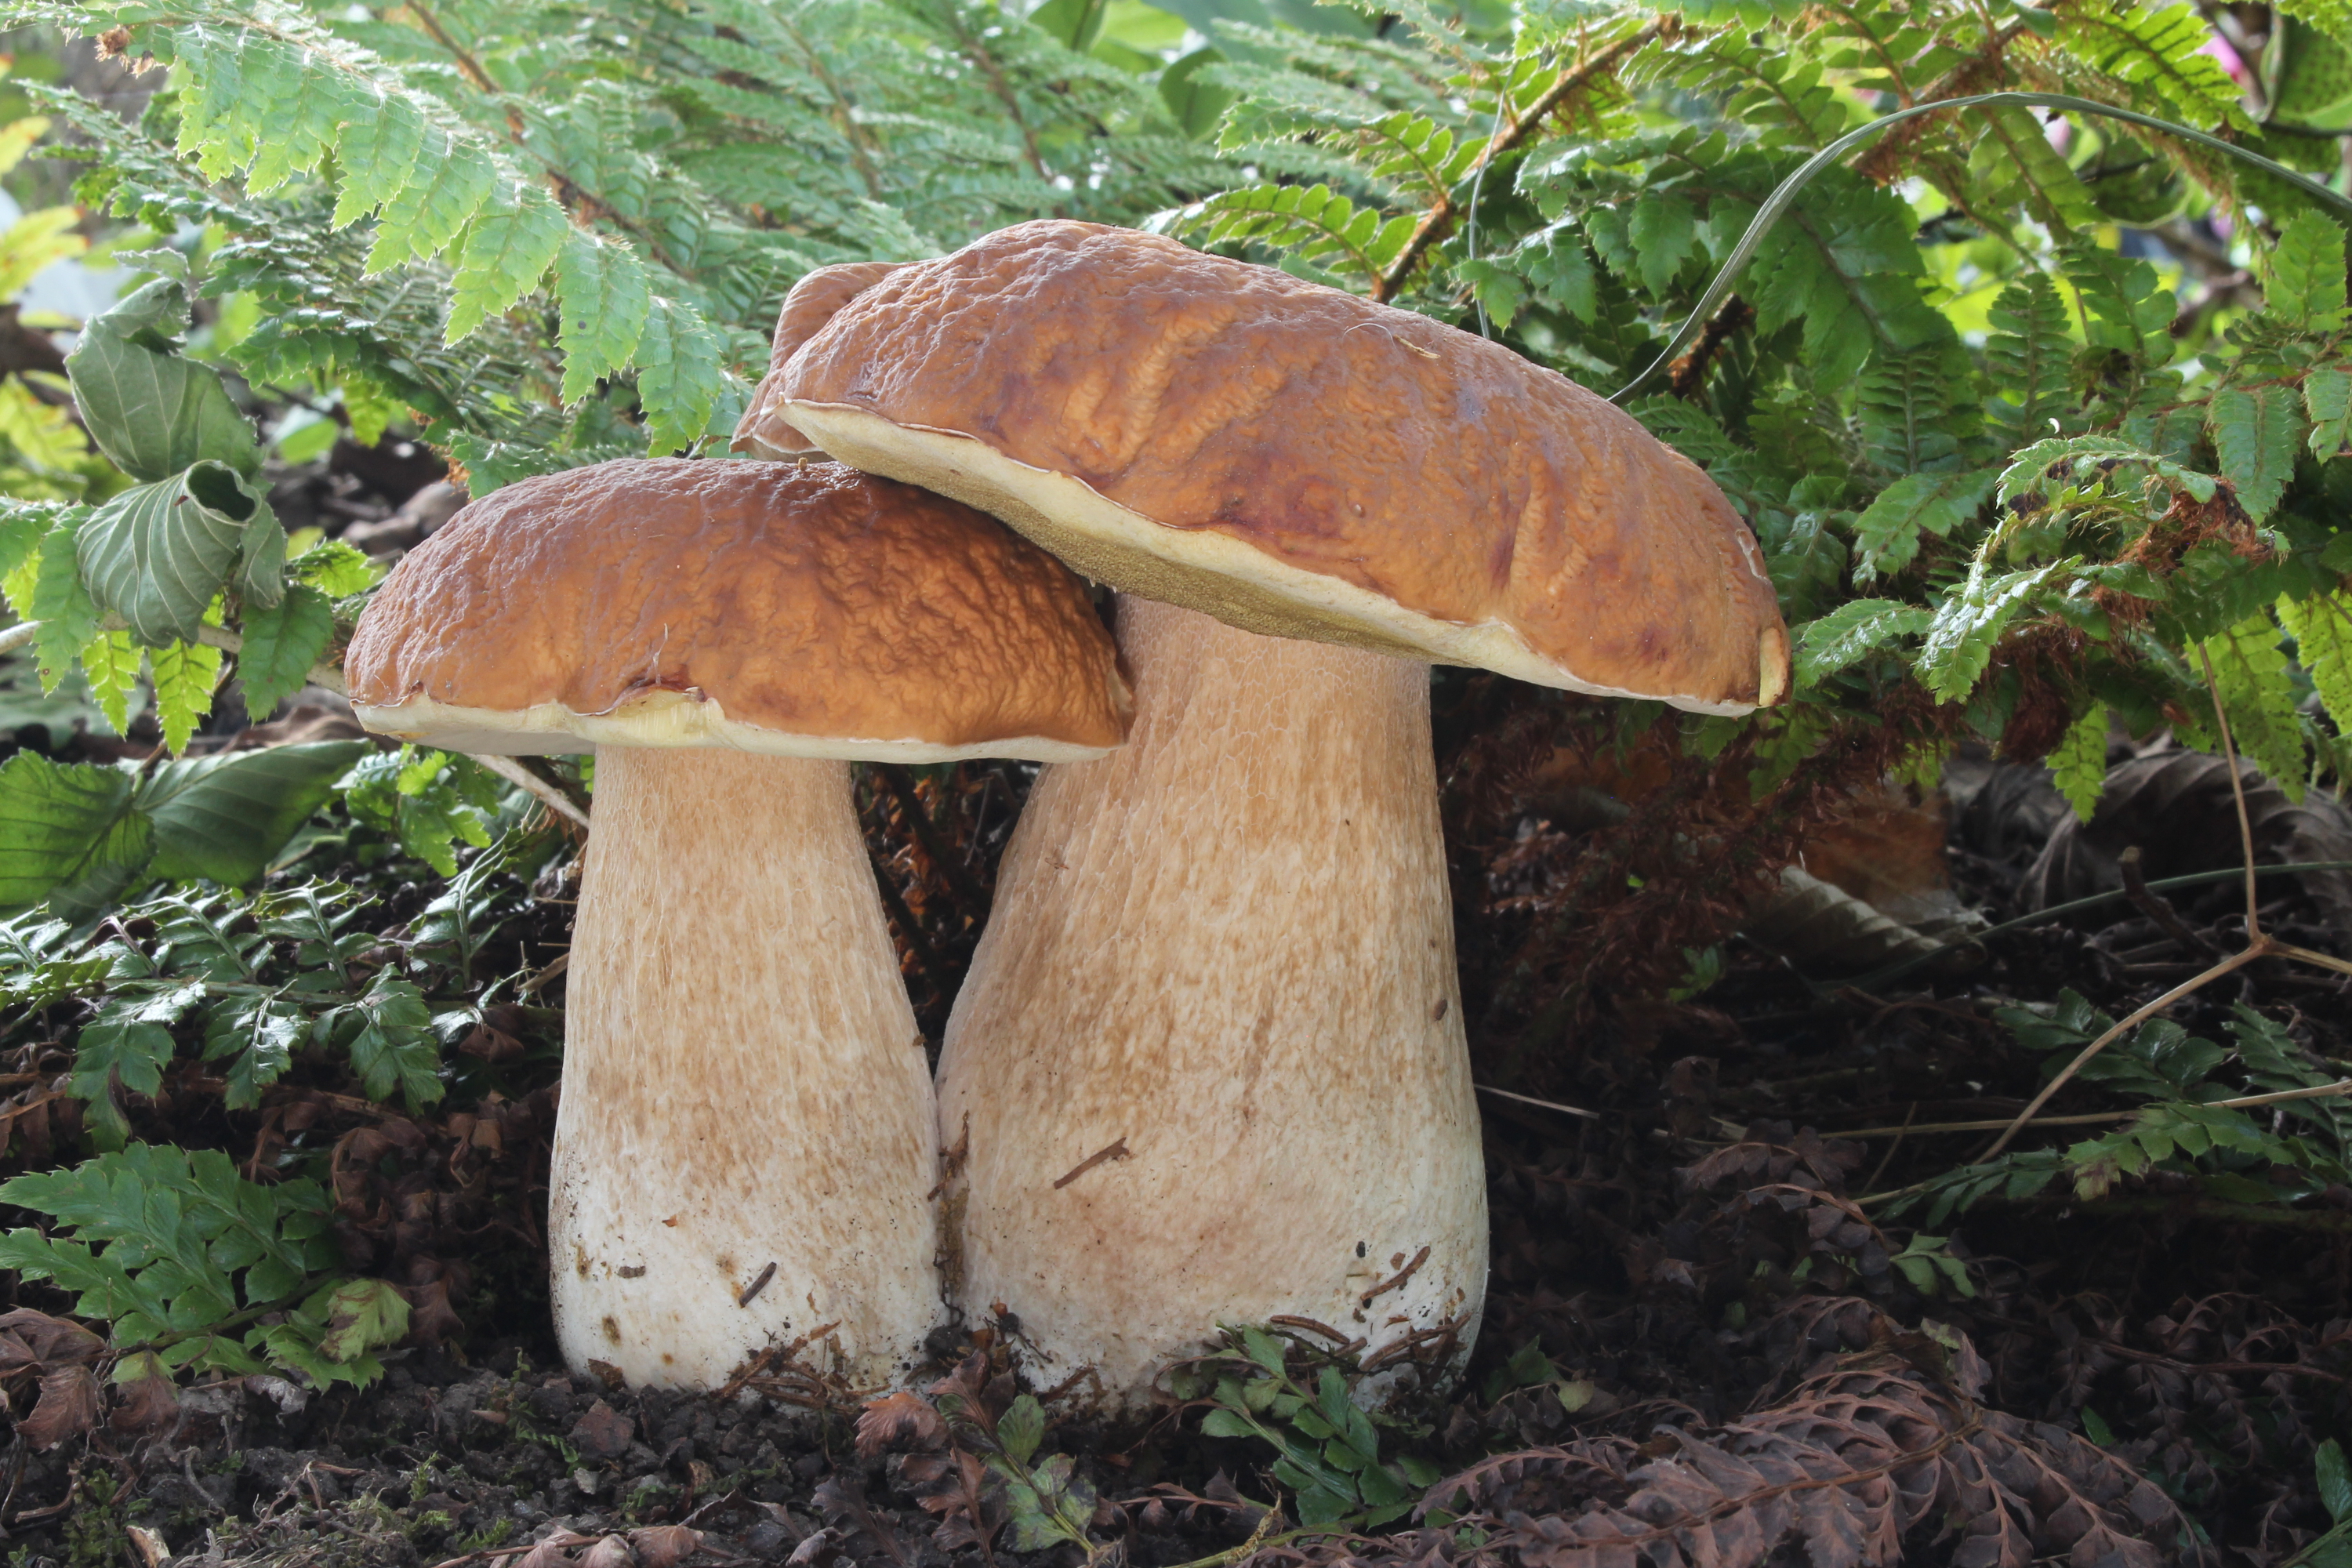
Boletus edulis
Асноўныя адрозненні
Польскі грыб (Imleria badia) і баравік высакародны (Boletus edulis) — папулярныя ядомыя грыбы. Баравік высакародны мае ножку са светлай сетачкай, а таксама поры, якія напачатку белыя, а з узростам становяцца ад жоўтых да жоўта-аліўкавых і пад націскам не змяняюць колер. Яго мякаць пасля разрэзвання застаецца белай. Польскі грыб мае карычняватую ножку без сетачкі, а поры пад націскам выразна сінеюць да блакітнага колеру. Мякаць польскага грыба пасля разрэзвання блакітнее, асабліва ў капелюшы і над трубачкамі.
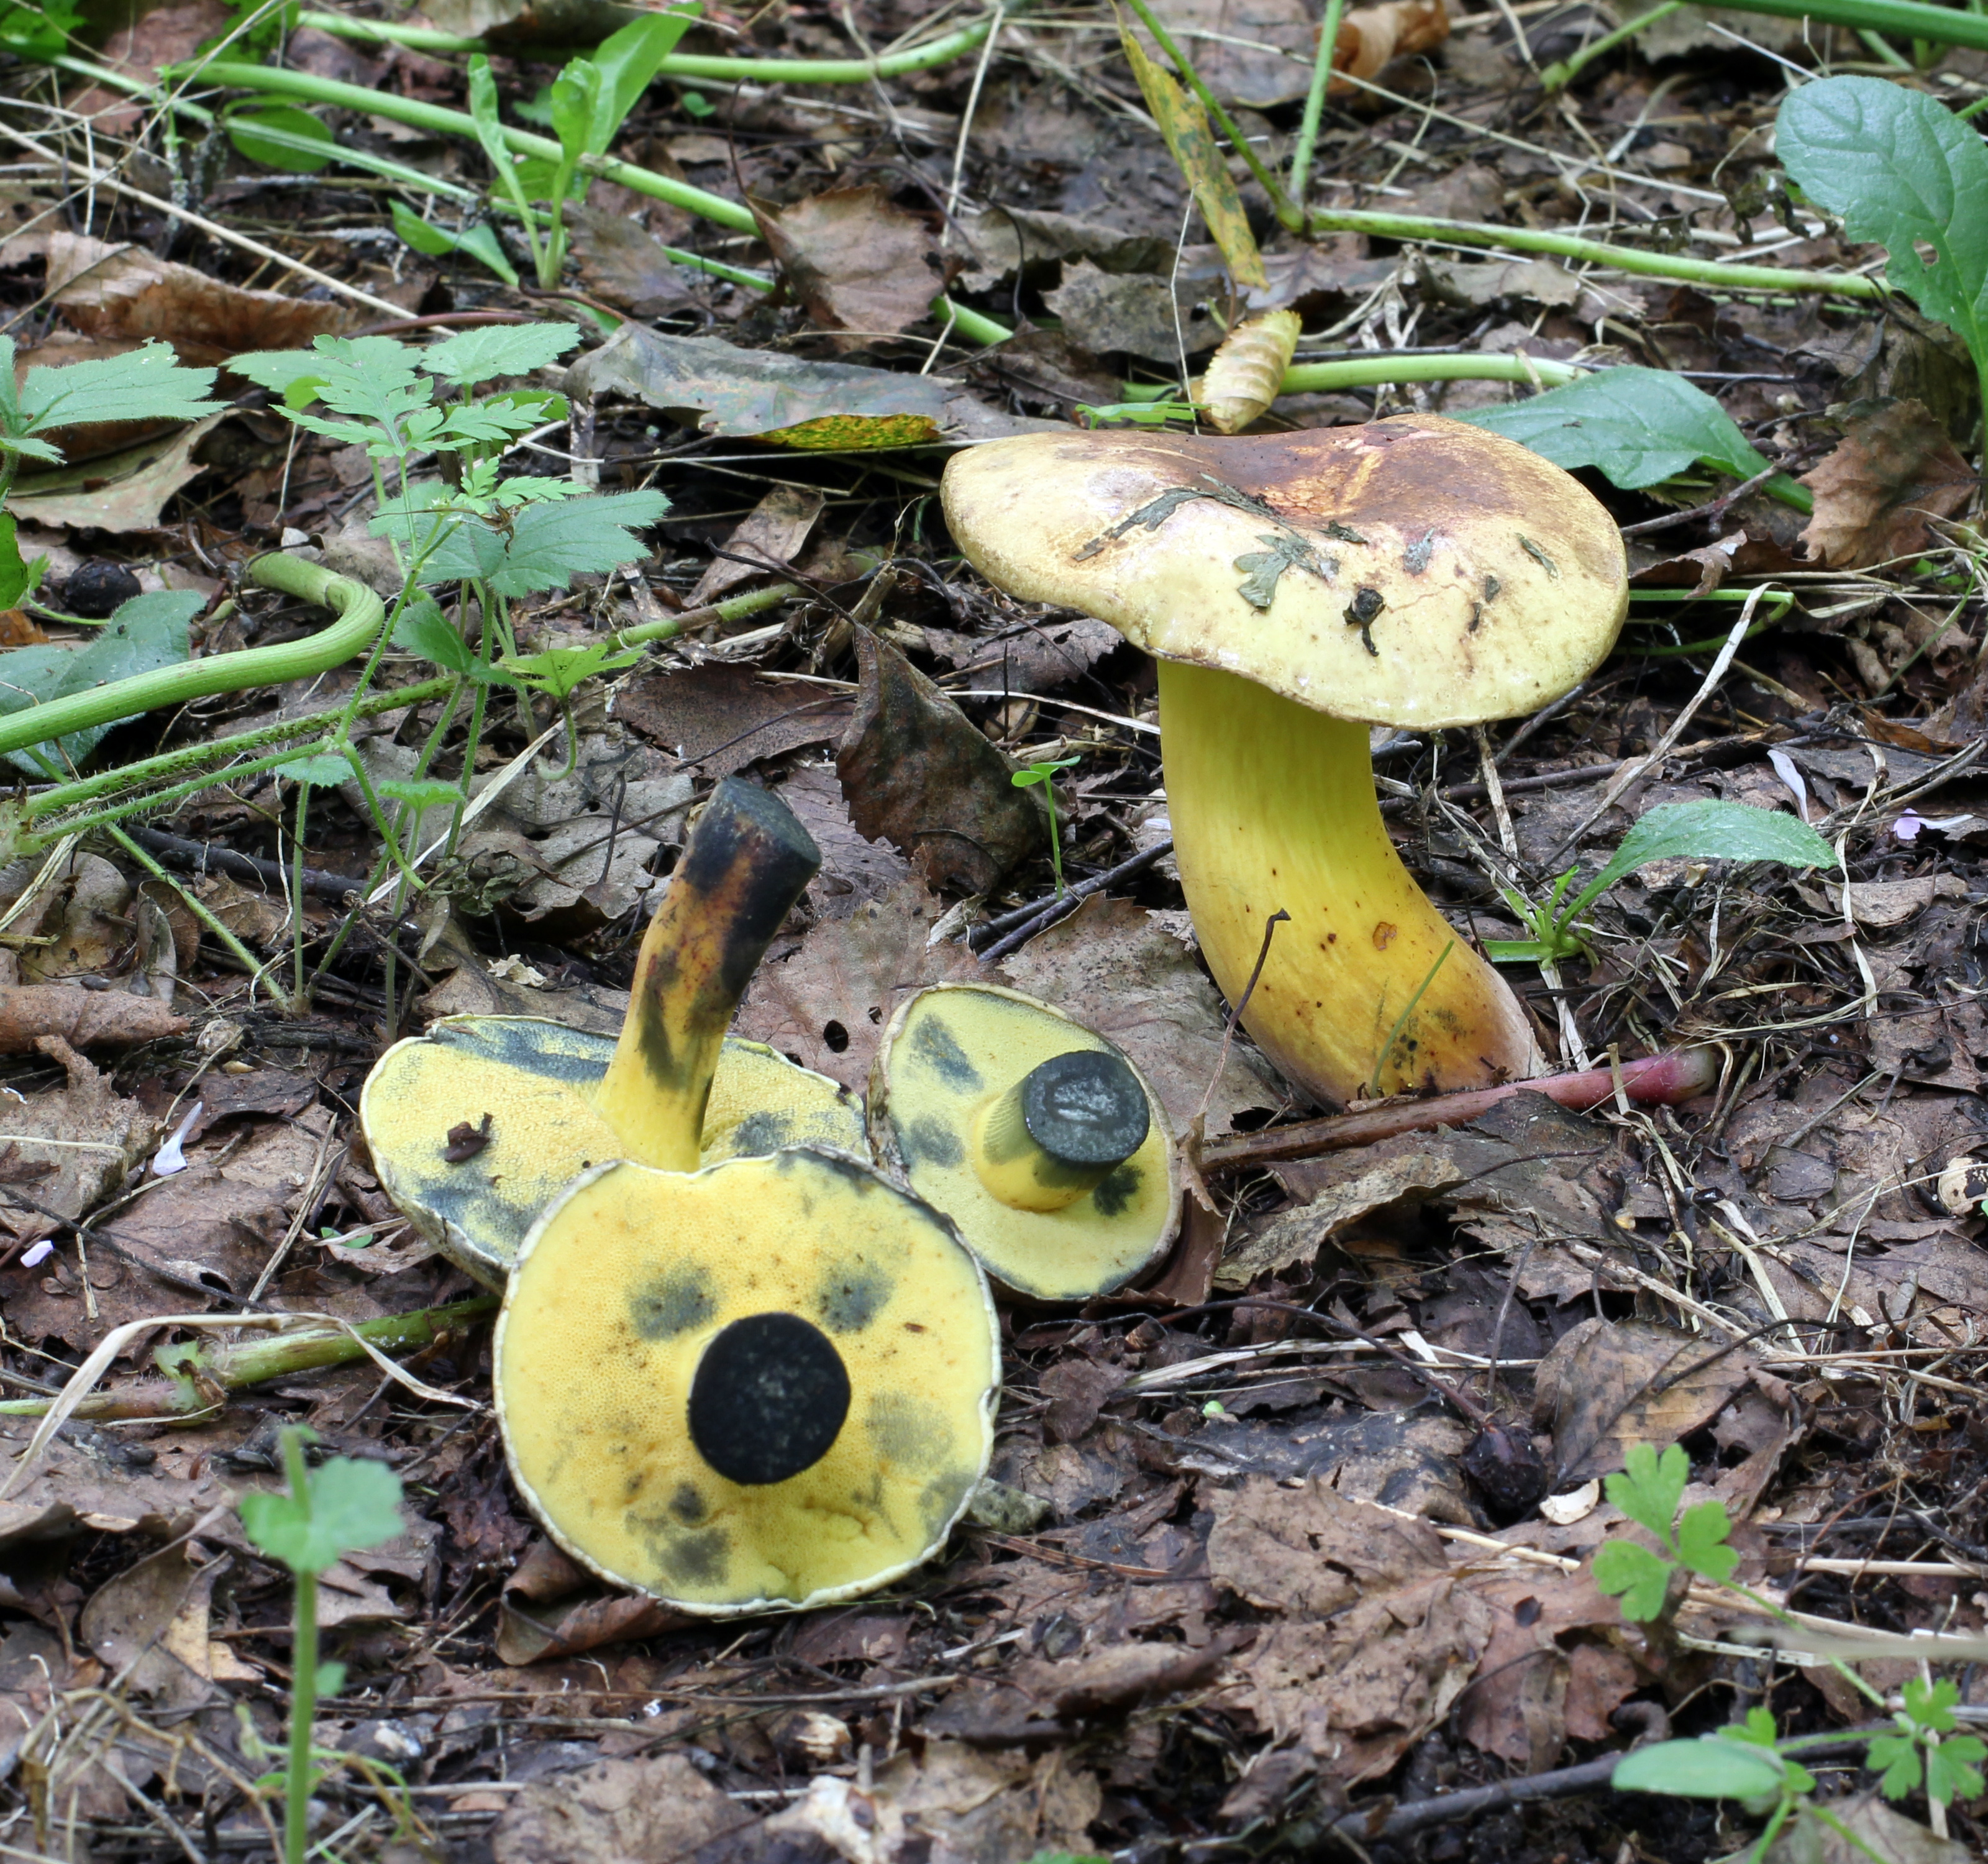
Cyanoboletus pulverulentus
Асноўныя адрозненні
Сінябаравік клінаножкавы (Cyanoboletus pulverulentus) рэагуе на дотык і пашкоджанне неадкладным, бурным і інтэнсіўным афарбоўваннем усіх частак пладовага цела ў глыбокі цёмна-сіні (гранатава-чорны) колер. У Imleria badia пасіненне менш раўнамернае і канцэнтруецца перш за ўсё над трубачкамі і ў верхняй частцы ножкі.
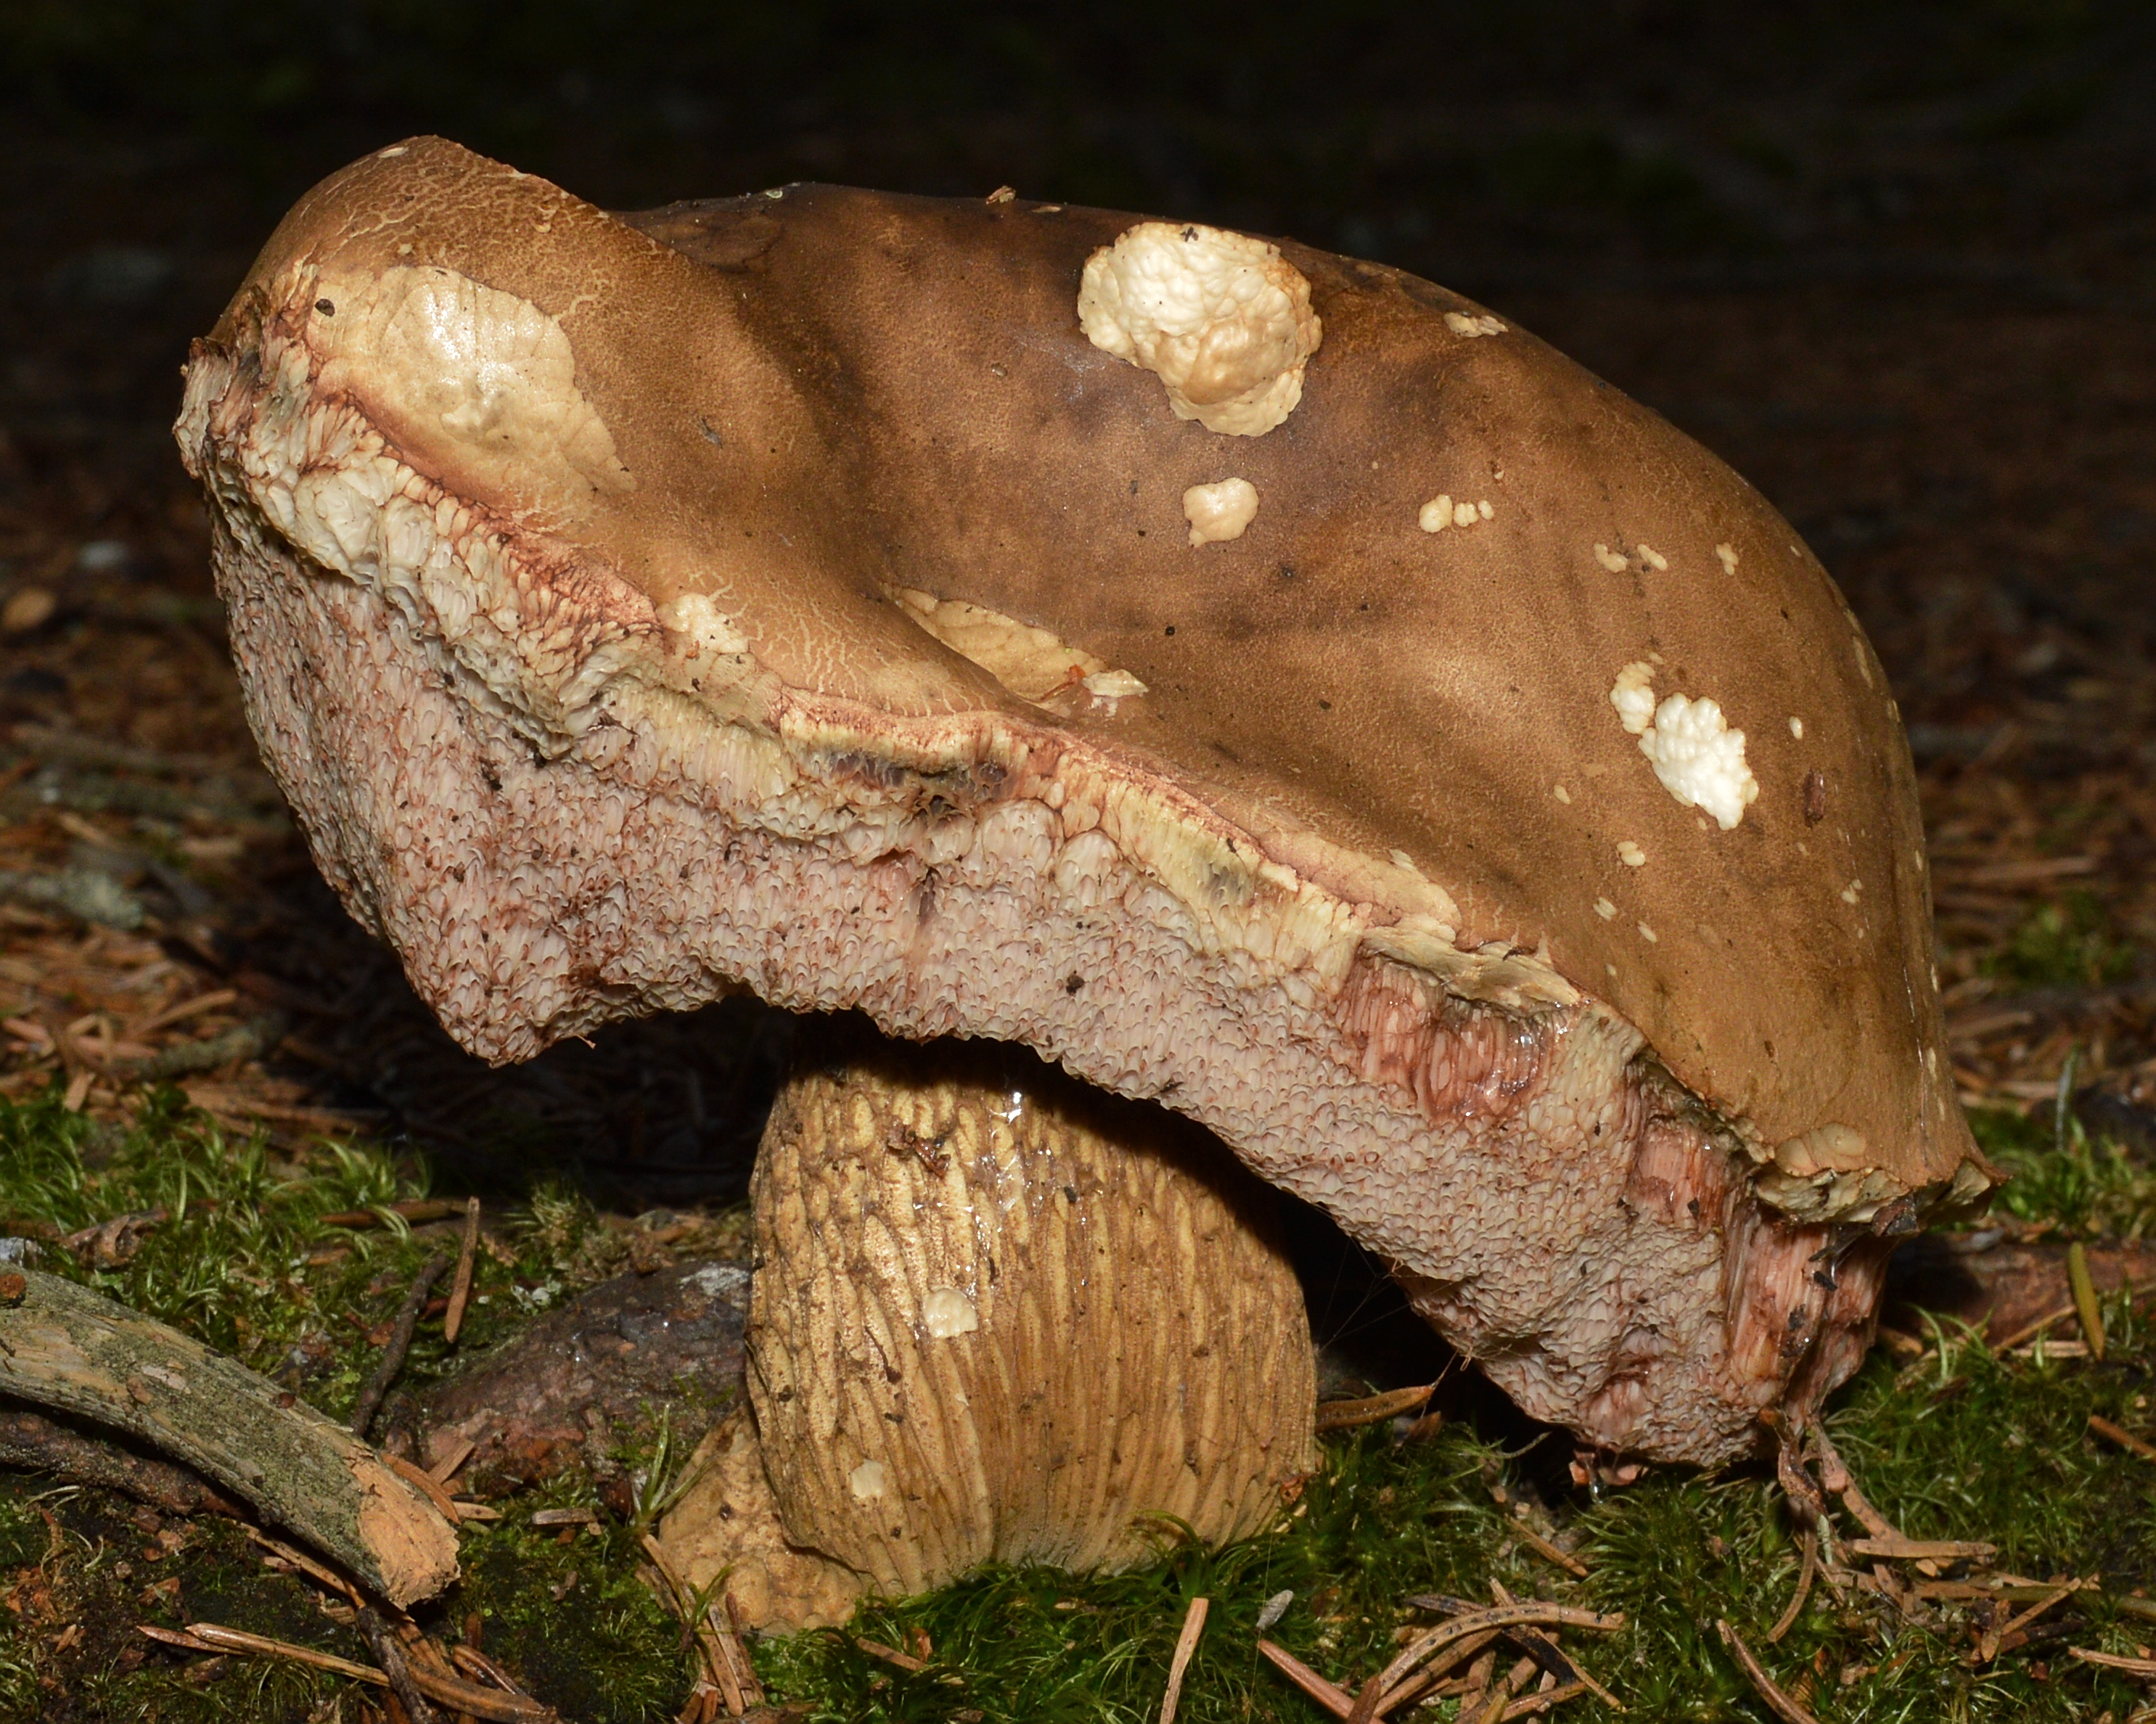
Tylopilus felleus
Асноўныя адрозненні
Жоўцевы грыб (Tylopilus felleus) мае поры і трубачкі спачатку белыя, а з узростам ружавеючыя, выразную цёмную сетачку на ножцы і моцна горкі смак мякаці, што робіць яго неядомым грыбам.
Польскі грыб (Imleria badia) часам блытаюць з маладымі, больш цёмнымі пладовымі целамі жоўцевага грыба. Аднак польскі грыб мае жаўтлявыя трубачкі (у жоўцевага грыба яны ад белых да ружаватых), а ножка пазбаўлена тоўстай цёмнай сеткі з выпуклымі ячэйкамі, характэрнай для жоўцевага грыба.
Xerocomellus pruinatus
Асноўныя адрозненні
Сухагрыб апылены (Xerocomellus pruinatus) можа нагадваць падгрыбка карычневага афарбоўкай шапкі.
FAQ
Як адрозніць падгрыбка карычневага ад гарчака?
Гарчак мае выразную цёмную сетачку на ножцы і трубачкі, якія з узростам ружавеюць і не сінеюць. Падгрыбак не мае сетачкі на ножцы, а яго трубачкі жаўтаватыя і пасля націскання адразу сінеюць.
Ці сінее падгрыбак карычневы?
Так. Трубачкі пасля націскання адразу выразна сінеюць, а мякаць блакітнее над трубачкамі. Гэта натуральная рэакцыя акіслення пігментаў; яна не азначае дэфекту ці атрутнасці і знікае пасля тэрмічнай апрацоўкі.
Ці можна вырошчваць падгрыбка карычневага ў садзе?
На практыцы не. Гэта строга мікарызны грыб — ён патрабуе жывога сімбіёзу з каранямі дрэў (пераважна соснаў). 'Садовыя грыбніцы', якія прадаюцца ў крамах, амаль ніколі не даюць у садзе сапраўднага ўраджаю.
Дзе шукаць падгрыбка карычневага?
Перш за ўсё ў сасновых і яловых барах, радзей пад дубамі ці букамі. Любіць кіслыя, пясчаныя глебы, дываны зялёных імхоў і ўскрайкі верасоўнікаў, утвараючы мікарызу з дрэвамі.
Ці падгрыб карычневы і падгрыбак карычневы — гэта адзін і той жа від?
Так, гэта адзін і той жа грыб (Imleria badia). 'Падгрыб' — гэта афіцыйная мікалагічная форма, а 'падгрыбак' — традыцыйная назва грыбнікоў. У старых атласах ён фігураваў як Boletus badius і Xerocomus badius.
Калі расце падгрыбак карычневы ў Польшчы?
Пік збору прыпадае на восень: з верасня да канца кастрычніка, асабліва пасля багатых дажджоў і больш халодных начэй. Першыя экзэмпляры трапляюцца з чэрвеня, а сезон закрываюць замаразкі.
Ці азначае слізкая шапка падгрыбка сапсаванасць?
Не. Падчас дажджу скурка падгрыбка натуральным чынам становіцца ліпкай і слізістай, а ў засуху яна матавая. Пра сапсаванасць сведчыць толькі губчатая, мяккая мякаць, белы налёт цвілі або затхлы пах.
Аматар
Ніз шапкі
- Дыяметр пор
- Дыяметр пор: 0,5–1,5 mm.
- Даўжыня трубачак
- Даўжыня трубачак: да 20 mm.
- Будова пор
- Будова пор: складаныя (трубачкі).
Назвы і гісторыя
- Obowiązująca nazwa krajowa
- podgrzyb brunatny
- Obowiązująca nazwa taksonomiczna
- Imleria badia (Fr.) Vizzini
- Inne nazwy krajowe
- czarny łebek, czarny łepek, podgrzyb, podsosnówka
- Dawne nazwy krajowe
- podgrzybek brunatny
Назіранні дома
Адбітак спораў
- Патрэбныя матэрыялы
- свежая, спелая шапка, аркуш паперы, шклянка або місачка, вада
- Час
- 2–24 h
- Выкананне
- Пакладзі шапку ніжнім бокам на паперу.
- Дадай кроплю вады наверх і накрый.
- Праз 2–24 гадзін падніміце шапку і агледзьце асадак.
Што шукаць
- Колер споравага адбітка
- Колер споравага адбітка: карычневы.
- Адценне споравага адбітка
- Адценне споравага адбітка: аліўкава-карычневы.
Пад мікраскопам
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, вада, споры з адбітка
- Выкананне
- Перанясі іголкай крыху адбітка на шкельца.
- Дадай кроплю вады, накрый шкельцам і разгледзь споры.
Што шукаць
- Памеры споры
- Даўжыня 11–18 µm, шырыня 4–6 µm.
Памеры параўноўвай пасля каліброўкі шкалы мікраскопа.
Пробы з рэактывамі
- Патрэбныя матэрыялы
- светлавы мікраскоп, прадметнае і покрыўнае шкельцы, іголка, споры з адбітка, гатовы раствор 5% KOH, фільтравальная папера, ахоўныя акуляры і пальчаткі для працы з KOH
- Выкананне
- Перанясіце крыху спор са споравага адбітка на чыстае прадметнае шкло.
- Дадайце кроплю гатовага раствору 5% KOH і накрыйце покрыўным шкельцам.
- Выдаліце лішак вадкасці ля краю шкельца фільтравальнай паперай. Агледзіце колер спор пад мікраскопам.
Што шукаць
- Колер спор у 5% KOH
- бледную аліўкава-карычневую
Экалогія і распаўсюджванне
- Рэакцыя глебы
- Рэакцыя глебы: кіслы.
- Грануламетрычны склад глебы
- Грануламетрычны склад глебы: пясчаны.
- Лісцевыя дрэвы ў наваколлі
- Лісцевыя дрэвы ў наваколлі: дуб.
Лісцевыя дрэвы ў наваколлі: вольха.
Лісцевыя дрэвы ў наваколлі: каштан ядомы.
Лісцевыя дрэвы ў наваколлі: граб.
Лісцевыя дрэвы ў наваколлі: бук. - Хвойныя дрэвы ў наваколлі
- Хвойныя дрэвы ў наваколлі: елка.
Хвойныя дрэвы ў наваколлі: піхта.
Хвойныя дрэвы ў наваколлі: сасна.
Хвойныя дрэвы ў наваколлі: тсуга.
Хвойныя дрэвы ў наваколлі: псеўдатсугі.
Хвойныя дрэвы ў наваколлі: туі. - Расліны травянога яруса паблізу
- Расліны травянога яруса паблізу: імхі.
- Мікарызныя партнёры
- цяплічны дослед, Шатландыя, востраў Б’ют, Вялікабрытанія, 2024, плоданашэнне ў прыродных умовах не пацверджана: Мікарызныя партнёры: Pinus sylvestris (кантраляваны дослед).
Агульная сувязь віду: Мікарызныя партнёры: Pinus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Picea (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Tsuga (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Fagus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Quercus (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Castanea (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Abies alba (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Pseudotsuga menziesii (агульны пералік партнёраў).
Агульная сувязь віду: Мікарызныя партнёры: Carpinus betulus (агульны пералік партнёраў).
Гісторыя і культура
Польскі грыб займае важнае месца ў грыбной традыцыі Цэнтральнай Еўропы і ў гісторыі мікалагічнай таксанаміі. У польскай народнай і рэгіянальнай наменклатуры існавалі шматлікія традыцыйныя найменні, якія адносіліся да вонкавага выгляду пладовых цел, такія як «czarny łepek», «kasztaniak», «grzyb gniady» (што паказваюць на цёмна-карычневую афарбоўку шапкі) або «siniak» (звязанае са з'явай пасінення пашкоджаных трубачак і мякаці).
У гісторыі навуковай мікалогіі від зведаў шэраг істотных класіфікацыйных змен, якія адлюстроўваюць эвалюцыю сістэматыкі трубчастых грыбоў. Першапачаткова ў 1818 годзе Эліяс Магнус Фрыс апісаў гэты таксон як Boletus castaneus β badius. Затым на працягу многіх дзесяцігоддзяў у мікалагічнай літаратуры ён фігураваў у родзе Xerocomus як Xerocomus badius, куды яго ўключыў Эдуар-Жан Жыльбер у 1931 годзе. У 2014 годзе італьянскі міколаг Альфрэда Віцыні на аснове сучасных малекулярна-філагенетычных даследаванняў стварыў новы род Imleria (названы ў гонар бельгійскага даследчыка Луі Імлера) і перанёс у яго гэты таксон пад назвай Imleria badia, што пацвердзіла яго адасобленае эвалюцыйнае становішча ў межах сямейства Boletaceae.
Ядомасць і бяспека
Польскі грыб з'яўляецца каштоўным ядомым грыбам з далікатным, прыемным водарам і мяккім смакам з адчувальнай лясной ноткай. Безумоўнай умовай бяспечнага спажывання гэтага віду з'яўляецца тэрмічная апрацоўка пладовых цел — адварванне, смажанне або тушэнне. Варта падкрэсліць, што сушка пладовых цел уяўляе сабой толькі метад кансервацыі сыравіны і не замяняе тэрмічнай апрацоўкі; сушаныя грыбы перад ужываннем таксама павінны быць падвергнуты адварванню або іншай адпаведнай цеплавой апрацоўцы. Ужыванне пладовых цел у сырым або недавараным выглядзе стварае рызыку ўзнікнення стрававальных расстройстваў.
Спецыфічным і істотным пытаннем аховы здароўя, звязаным з гэтым відам, з'яўляецца яго высокая здольнасць да акумуляцыі радыеактыўных элементаў і металаў. У даследаваннях, апублікаваных у 2026 годзе (Roczniki Państwowego Zakładu Higieny), была задакументавана выразная акумуляцыя радыяцэзію (цэзій-137) у пладовых целах польскага грыба, сабраных з забруджаных лясных тэрыторый. У сувязі з гэтым рэкамендуецца асаблівая асцярожнасць і пазбяганне збору грыбоў на тэрыторыях з гістарычным радыеактыўным забруджваннем. Да спажывання не прыдатныя таксама старыя і пераспелыя пладовыя целы.
Найважнейшыя рэчывы і іх дзеянне
Нарбадзіён A і цэзій
Podgrzybek brunatny zawiera norbadion A – barwnik wykazujący zdolność do silnego wiązania i kumulowania kationów cezu, w tym promieniotwórczego izotopu ¹³⁷Cs. Stopień akumulacji radionuklidów zależy od lokalnego skażenia podłoża i opadu promieniotwórczego na danym stanowisku.
Месцапражыванне і сустракальнасць
Польскі грыб (Imleria badia) характарызуецца шырокім геаграфічным арэалам у Паўночным паўшар'і. Згодна з біягеаграфічнай і філагенетычнай рэвізіяй (Zhao і інш., 2014), гэты від сустракаецца ў Еўропе, Паўночнай Амерыцы і, верагодна, на Далёкім Усходзе Азіі.
Гэты від засяляе пераважна хвойныя і мяшаныя лясы, а зрэдку сустракаецца і ў лісцевых дрэвастоях. Ён утварае мікарызныя сувязі з рознымі відамі дрэў, у тым ліку з сасной звычайнай, елкай еўрапейскай, лістоўніцай, а таксама букам лясным і дубамі. Патрабуе субстратаў з кіслай рэакцыяй, бедных на карбанат кальцыю і водапранікальных. Пладовыя целы вырастаюць на пясчаных глебах, сярод тоўстых пластоў хвойнага подсцілу, у курцінах імхоў, на верасоўніках, а таксама на моцна спарахнелай драўніне і гнілых пнях хвойных дрэў.
Згодна з задакументаванымі феналагічнымі дадзенымі для Польшчы і Чэхіі (табліцы PL і CZ), сезон плоданашэння польскага грыба ахоплівае перыяд з чэрвеня па лістапад (месяцы VI–XI). Рэгіянальная неаднастайнасць з'яўлення пладовых цел залежыць у асноўным ад наяўнасці хвойных і мяшаных лясоў на бедных, кіслых пясчаных глебах.
Асяроддзе, рэгіён і сезон
W Czechach grzyb ten rośnie bardzo licznie od czerwca do listopada, niekiedy do początku zimy, przede wszystkim pod świerkami, a w drzewostanach liściastych głównie pod dębami. Owocniki nie wykazują odporności na mróz.
Gatunek jest szeroko rozprzestrzeniony w Europie i Ameryce Północnej, od nizin po regiel górny i granicę lasu. Jako partnerów mikoryzowych wymienia się drzewa iglaste z rodzajów Abies, Picea, Pinus, Pseudotsuga, Thuja i Tsuga, a także liściaste z rodzajów Alnus, Castanea, Carpinus, Fagus i Quercus. Dane molekularne ITS wskazują również na prawdopodobne występowanie w Azji Wschodniej i Afryce Południowej.
Даследчык
Ядомасць і кулінарыя
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Ядомасць
- Ядомы — źródło oznaczenia
Źródło bez opisu bibliograficznego · Retained UTF-8 HTML, line 554; jadalne czy trujące?
- Кулінарная ацэнка
- Вельмі смачны
Źródło bez opisu bibliograficznego · Retained windows-1250 HTML, line 129; Kuchyňské využití
- Гандаль
- Дапушчаны да гандлю
Obszar: PL
Zał.1 lp.50; pozostałe wymagania aktu, w tym atest, zachowane.
W Polsce jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U.2026 poz.258 · PDF str.2–3: § 2–6; str.5–7: zał.1 lp.1–72; status ELI obowiązujący
Навуковыя назвы і таксанамія
- Цяперашняя навуковая назва
Imleria badia (Fr.) Vizzini
- Ранейшыя навуковыя назвы
- 1818 — Boletus castaneus β badius Fr.
1821 — Boletus badius (Fr.) Fr.
1828 — Boletus castaneus var. badius (Fr.) Fr.
1836 — Boletus glutinosus Krombh.
1838 [1836–1838] — Boletus vaccinus Fr.
1874 [1874–1875] — Boletus limatulus Frost
1881 — Rostkovites badius (Fr.) P. Karst.
1882 — Tubiporus vaccinus (Fr.) P. Karst.
1882 — Tubiporus vaccinus var. ebulbis Fr. ex P. Karst.
1886 — Dictyopus aereus var. vaccinus (Fr.) Quél.
1886 — Viscipelles badia (Fr.) Quél.
1888 — Ixocomus badius (Fr.) Quél.
1898 — Suillus badius (Fr.) Kuntze
1898 — Suillus limatulus (Frost) Kuntze
1898 — Suillus vaccinus (Fr.) Kuntze
1912 [1911] — Boletus badius var. glutinosus (Krombh.) Smotl.
1931 — Xerocomus badius (Fr.) E.-J. Gilbert
1945 — Xerocomus badius var. limatulus (Frost) Snell
1960 — Xerocomus badius f. labyrinthicus Wichanský
1976 — Boletus badius var. glaber Grund & K.A. Harrison
1976 — Boletus badius var. macrostipitatus Grund & K.A. Harrison
2007 — Xerocomus badius f. vaccinus (Fr.) Klofac
2016 — Imleria badia f. vaccina (Fr.) Klofac
2018 — Imleria badia var. limatula (Frost) Blanco-Dios[23]
Obecnie przyjęta nazwa naukowa to Imleria badia (Fr.) Vizzini. Gatunek należy do rodziny Boletaceae, rzędu Boletales oraz klasy Agaricomycetes. Bazonimem jest Boletus castaneus β badius Fr. z 1818 roku. Alfredo Vizzini utworzył rodzaj Imleria i opublikował nową kombinację 12 maja 2014 roku w Index Fungorum 147; taksonomiczne numery rejestracyjne to odpowiednio 550568 i 550569.
[23] [30] [32]W dawniejszym piśmiennictwie podgrzybek brunatny opisywany był głównie jako Boletus badius oraz Xerocomus badius. Dla nazwy Boletus badius rejestr Species Fungorum podaje rok 1821, rewizja Zhu i współautorów wskazuje 1828, a atlas czeski – 1832, przy czym źródła te wymieniają odmienne publikacje pierwotnego opisu. W przypadku nazwy Imleria badia wszystkie trzy opracowania zgodnie podają autorstwo Vizziniego z 2014 roku. Z kolei przy Boletus castaneus var. badius Species Fungorum podaje rok 1828, natomiast rewizja wskazuje 1821.
[23] [32] [13]Rewizja przeprowadzona przez Zhu i współautorów w 2014 roku wyodrębniła rodzaj Imleria z wąsko ujmowanych rodzajów Xerocomus, Xerocomellus i Boletus. W obrębie Imleria wyróżniono cztery gatunki: Imleria badia, Imleria obscurebrunnea, Imleria parva oraz Imleria subalpina. Dawniejsze chińskie doniesienia pod nazwą Boletus badius odnosiły się do trzech pozostałych gatunków, stąd ich dane morfologiczne i ekologiczne nie dotyczą bezpośrednio podgrzybka brunatnego.
[30] [32]W rewizji filogenetycznej analizowano pięć markerów DNA: ITS, nrLSU, tef1α, rpb1 oraz rpb2. Wielogenowa analiza obejmowała regiony 5.8S, nrLSU, tef1α, rpb1 i rpb2, a region ITS badano również osobno. Łącznie dla badanych taksonów uzyskano 55 nowych sekwencji: 13 ITS, 13 nrLSU, 11 tef1α, 10 rpb1 oraz 8 rpb2.
[32]Wielogenowy zbiór danych obejmował 45 taksonów i 4802 pozycje, natomiast oddzielna analiza ITS liczyła 26 sekwencji i 645 pozycji. Wsparcie dla kladu Imleria wyniosło BS = 100% i PP = 1,0. Średnia odległość genetyczna ITS pomiędzy europejskimi a północnoamerykańskimi kolekcjami Imleria badia wyniosła 0,0026 i była wyraźnie niższa od najmniejszego międzygatunkowego dystansu w rodzaju, wynoszącego 0,0176, co uzasadniło utrzymanie populacji z obu kontynentów w ramach jednego gatunku.
[32]Epityp gatunku stanowi szwedzki okaz zebrany przez A. Strida 28 sierpnia 1993 roku w Nordingrå (A. Strid 19707, S-F119691). Z epitypu uzyskano sekwencje referencyjne o numerach dostępu: ITS KJ806970, nrLSU KJ806971, tef1α KJ806969, rpb1 KJ806972 oraz rpb2 KJ806973.
[32]Pomiary mikroskopowe w rewizji taksonomicznej prowadzono na suchych okazach rehydratowanych w 5% KOH, a ocenę barw struktur mikroskopowych wykonywano w wodzie i w KOH. Skórkę kapelusza badano na promienistych przekrojach pionowych w połowie promienia kapelusza, a łuseczki trzonu pobierano z połowy jego wysokości. Obserwacje ultrastruktury zarodników wykonano w mikroskopie skaningowym Hitachi S4800 przy napięciu 10,0 kV.
[32]Экалогія і распаўсюджванне
Лабараторная дыягностыка
Dane ustrukturyzowane
Базідыі
Каўлацыстыды
Пражка
- Спражкі
- Спражкі: адсутны. [32]
Гіменіяльныя цыстыды
- Аптычны выгляд гіменіяльных цыстыд
- Аптычны выгляд гіменіяльных цыстыд: гіялінавы. [32]
- Размеркаванне гіменіяльных цыстыд
- Размеркаванне гіменіяльных цыстыд: рассеяныя. [32]
- Даўжыня сумесна апісаных гіменіяльных цыстыд
- Даўжыня сумесна апісаных гіменіяльных цыстыд: 35–65 µm. [32]
- Форма сумесна апісаных гіменіяльных цыстыд
- Форма сумесна апісаных гіменіяльных цыстыд: ланцэтападобныя, амаль верацёнападобныя з кароткім вастрыём або брухаты. [32]
- Таўшчыня сценкі сумесна апісаных гіменіяльных цыстыд
- Таўшчыня сценкі сумесна апісаных гіменіяльных цыстыд: танкасценны. [32]
- Шырыня сумесна апісаных гіменіяльных цыстыд
- Шырыня сумесна апісаных гіменіяльных цыстыд: 6–10 µm. [32]
Мікарыза
- Галінаванне мікарызы
- Галінаванне мікарызы: дыхатамічнае або неразгалінаваныя. [29]
- Даўжыня мікарызы
- Даўжыня мікарызы: 2–10 mm. [29]
- Багацце адыходзячых гіф мікарызы
- Багацце адыходзячых гіф мікарызы: нешматлікія. [29]
- Будова сеткі Гартыга
- Будова сеткі Гартыга: тыпу Palmetti. [29]
- Выгляд мантыі мікарызы
- Выгляд мантыі мікарызы: серабрысты. [29]
- Будова мантыі мікарызы
- Будова мантыі мікарызы: плектэнхіматычная. [29]
- Рэльеф паверхні мантыі мікарызы
- Рэльеф паверхні мантыі мікарызы: гладкі. [29]
- Колер рызаморфаў мікарызы
- Колер рызаморфаў мікарызы: белаваты. [29]
- Наяўнасць рызаморфаў мікарызы
- Наяўнасць рызаморфаў мікарызы: наяўны. [29]
Скурка шапкі
- Колер гіф скурачкі шапкі
- Колер гіф скурачкі шапкі: жаўтаватыя. [32]
- Інкрустацыя гіф скуркі
- Інкрустацыя гіф скуркі: наяўны. [32]
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве
- Размяшчэнне гіф скуркі ў гелепадобным рэчыве: наяўны. [32]
- Колер пігменту скуркі
- Колер пігменту скуркі: жоўта-карычневай. [32]
- Будова скуркі капялюшыка
- у маладых пладовых цел: Будова скуркі капялюшыка: іксатрыхадэрма. [32]
у спелых пладовых цел: Будова скуркі капялюшыка: пераплеценая іксатрыхадэрма. [32] - Форма верхавіны канцавой клеткі скуркі шапкі
- Форма верхавіны канцавой клеткі скуркі шапкі: закруглены. [32]
Форма верхавіны канцавой клеткі скуркі шапкі: звужаецца. [32] - Даўжыня канцавой клеткі скуркі шапкі
- Даўжыня канцавой клеткі скуркі шапкі: 30–60 µm. [32]
- Форма канцавой клеткі скуркі шапкі
- Форма канцавой клеткі скуркі шапкі: цыліндрычны. [32]
- Шырыня канцавой клеткі скуркі шапкі
- Шырыня канцавой клеткі скуркі шапкі: 4–7 µm. [32]
Рэакцыі з рэактывамі
Паслядоўнасці ДНК
- Паслядоўнасць
- Imleria badia; ITS; KJ806970; S-F119691(epitype)
- Паслядоўнасць
- Imleria badia; nrLSU; KJ806971; S-F119691(epitype)
- Паслядоўнасць
- Imleria badia; tef1alpha; KJ806969; S-F119691(epitype)
- Паслядоўнасць
- Imleria badia; rpb1; KJ806972; S-F119691(epitype)
- Паслядоўнасць
- Imleria badia; rpb2; KJ806973; S-F119691(epitype)
- Паслядоўнасць
- Imleria badia; rDNA58S; KC215204; HKAS53502
- Паслядоўнасць
- Imleria badia; nrLSU; KC215213; HKAS53502
- Паслядоўнасць
- Imleria badia; tef1alpha; KC215247; HKAS53502
- Паслядоўнасць
- Imleria badia; rpb1; KC215226; HKAS53502
- Паслядоўнасць
- Imleria badia; rpb2; KC215235; HKAS53502
- Паслядоўнасць
- Imleria badia; nrLSU; KC215212; HKAS74714
- Паслядоўнасць
- Imleria badia; tef1alpha; KC215242; HKAS74714
- Паслядоўнасць
- Imleria badia; rpb1; KC215224; HKAS74714
Споры
- Колер спор пад мікраскопам
- Колер спор пад мікраскопам: амаль гіялінавыя. [32]
- Кроплі ўнутры споры
- Кроплі ўнутры споры: 1–2. [32]
- Даўжыня споры
- Даўжыня споры: 11–18 µm. [24]
Даўжыня споры: 11–17,5 µm. [32]
Даўжыня споры: 12–16 µm. [13] - Суадносіны даўжыні і шырыні споры
- Суадносіны даўжыні і шырыні споры: 2,3–4,2. [32]
- Форма споры
- Форма споры: амаль верацёнападобны. [32]
Форма споры: эліпсоідны. [32]
Форма споры: падоўжана-эліпсоідны. [32] - Паверхня споры
- Паверхня споры: гладкі. [32]
- Таўшчыня сценкі споры
- Таўшчыня сценкі споры: 0,5 µm. [32]
Трама гіменафора
Матэрыял і метады даследаванняў
Найважнейшыя рэчывы і іх дзеянне
Próbki marynat odsączono, zamrożono, poddano liofilizacji i rozdrobnieniu, a bezpośrednio przed pomiarem suszono sublimacyjnie przez trzy dni. Aktywność gamma mierzono spektrometrem z detektorem germanowym HPGe o wydajności względnej 18% i rozdzielczości 1,9 keV przy energii 1,332 MeV. Wyniki przeliczono na moment pobrania próbek, a zawartość potasu obliczono na podstawie aktywności ⁴⁰K.
[22]- Вынікі, пададзеныя ў крыніцах — Даўжыня споры
- Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 12–16 µm; zakres pomiaru: korpus [13]
Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć długość od 11 do 17,5 mikrometra. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 11–18 µm; zakres pomiaru: korpus [24] - Вынікі, пададзеныя ў крыніцах — Шырыня споры
- Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć szerokość od 3,5 do 5 mikrometrów. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4,5–6 µm; zakres pomiaru: korpus [24]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4–5,5 µm; zakres pomiaru: korpus [13]
Metody i zapisy źródłowe — Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera.
Stan materiału: ponownie nawodniony.
Pochodzenie materiału: Badane europejskie kolekcje rewizji SE/DE/IT; nie wynik z Polski..
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia 25–48 × 8–14 μm, clavate, 4-spored.” [32]
Kształt podstawki — zapis źródłowy: „clavate” [32]
Układ kaulocystyd — zapis źródłowy: „caespitose” [32]
Długość kaulocystyd; Szerokość kaulocystyd — zapis źródłowy: „Caulocystidia 29–65 × 5–9 μm” [32]
Kształt kaulocystyd — zapis źródłowy: „clavate, ventricose” [32]
Wygląd optyczny cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia ... hyaline when young” [32]
Rozmieszczenie cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered” [32]
Długość wspólnie opisanych cystyd hymenialnych; Szerokość wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered, 35–65 × 6–10 μm” [32]
Kształt wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „lanceolate to subfusoid-mucronate or ventricose” [32]
Grubość ściany wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „thin-walled” [32]
Barwa strzępek skórki kapelusza — zapis źródłowy: „yellowish interwoven hyphae” [32]
Inkrustacja strzępek skórki — zapis źródłowy: „slightly incrusted by yellow-brown (4B8) pigment” [32]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „embedded in gelatinous substance” [32]
Barwa pigmentu skórki — zapis źródłowy: „yellow-brown (4B8) pigments” [32]
Organizacja skórki kapelusza — zapis źródłowy: „ixotrichoderm in youth” [32]
Organizacja skórki kapelusza — zapis źródłowy: „becoming an ixo-intricate-trichoderm when mature” [32]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „terminal cells cylindrical with rounded to tapering apex, 30–60 × 4–7μm.” [32]
Barwa zarodnika w mikroskopie — zapis źródłowy: „nearly hyaline to pale olivaceous brown (2B6) in 5% KOH” [32]
Krople wewnątrz zarodnika — zapis źródłowy: „Jedna lub dwie krople w dojrzałych zarodnikach.” [32]
Długość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; długość 11–15(17,5) µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = (2,3)2,5–3,6(4,2); Qm = 3,0 ± 0,33 (średnia ± odchylenie standardowe); 160 zarodników / 8 owocników / 5 kolekcji.” [32]
Kształt zarodnika — zapis źródłowy: „Boletoidalne: z boku niemal wrzecionowate, od czoła elipsoidalne do podłużnych.” [32]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie pod mikroskopem świetlnym i skaningowym.” [32]
Grubość ściany zarodnika — zapis źródłowy: „Ściana nieco pogrubiała, około 0,5 µm.” [32]
Szerokość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; szerokość (3,5)4–5 µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji.
Typ tramy hymenoforu — zapis źródłowy: „Gatunkowa uwaga na s. 33: Boletus badius ma prawdziwie boletoidalną tramę hymenoforu; terminologia na s. 3–4 zalicza ten podtyp do tramy bilateralnej.” [27]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji. Lista badanego materiału gatunku na s. 34: JŠ 373, 395, 1814, 1856, 1858, 1875, 1931–32, 1980–81, 2102–03, 3089, 3116, 3120, 3223–25, 4299. Zachowana jako kontekst publikacji, bez wyboru vouchera ani wyliczania N.
Typ tramy hymenoforu — zapis źródłowy: „Na s. 31 B. badius jest wymieniony wprost wśród taksonów z prawdziwie boletoidalną tramą. Wcześniejsza wspólna fraza o B. badius i B. moravicus dopuszcza wygląd boletoidalny lub prawie boletoidalny.” [28]
Metody i zapisy źródłowe — Controlled Imleria badia–Pinus sylvestris mycorrhizal experiment, Bute, Scotland
Pochodzenie materiału: Isle of Bute, Scotland, GB.
Rozgałęzienie mikoryzy — zapis źródłowy: „dichotomous ramification pattern or ramification was absent” [29]
Długość mikoryzy — zapis źródłowy: „2 mm to 10 mm” [29]
Obfitość strzępek wychodzących mikoryzy — zapis źródłowy: „infrequent emanating hyphae” [29]
Wzór sieci Hartiga mikoryzy — zapis źródłowy: „Palmetti-type pattern” [29]
Wygląd płaszczyka mikoryzy — zapis źródłowy: „The mantle was either silvery or smooth” [29]
Organizacja płaszczyka mikoryzy — zapis źródłowy: „plectenchymatous organisation” [29]
Relief powierzchni płaszczyka mikoryzy — zapis źródłowy: „either silvery or smooth” [29]
Barwa ryzomorf mikoryzy — zapis źródłowy: „whitish rhizomorphs” [29]
Obecność ryzomorf mikoryzy — zapis źródłowy: „Rhizomorphs were present” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „younger unramified ends whitish” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „older unramified ends ochre, yellowish-brown or whitish” [29]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; długość 11–18 µm, n i protokół niepodane.” [24]
Szerokość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; szerokość 4,5–6 µm, n i protokół niepodane.” [24]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; długość 12–16 µm, n i protokół niepodane.” [13]
Szerokość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; szerokość 4–5,5 µm, n i protokół niepodane.” [13]
Праверка пашырэння — абсяг і абмежаванні
Materiał: Pierwotne kolekcje autora atlasu z Dolnego Śląska.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Падрыхтоўка матэрыялу для мікраскапіі
- Materiał suszony, ponownie nawodniony. Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Materiał ponownie nawodniony. [32]
Protokół dla opisanych obserwacji: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Аб’ём апрацоўкі
Перад завяршэннем запіс патрабуе дапаўнення або ўліку.
- Пошук рэгіёнаў распаўсюджання патрабуе разліку.
- Сувязі папярэдніх высноў патрабуюць паўторнай праверкі.
- Новыя крыніцы патрабуюць уліку інфармацыі, выяўленай падчас агляду.
Прававая аснова і абсяг ацэнкі
Найважнейшыя рэчывы і іх дзеянне
W badaniach biochemicznych Gąseckiej i współpracowników (2017) oceniano profil metali, kwasów fenolowych oraz flawonoidów w owocnikach Imleria badia ze stanowisk o różnym stopniu zanieczyszczenia antropogenicznego. Z kolei Sotek i współpracownicy (2025) badali związki bioaktywne, zdolności antyoksydacyjne oraz zawartość pierwiastków śladowych w trzech gatunkach grzybów, w tym u podgrzybka brunatnego.
[18] [26]Аналітычныя вынікі
Imleria badia; рознічныя марынаваныя грыбы без марынаду; Gdańsk; 2016; сухая маса
Imleria badia; рознічныя марынаваныя грыбы без марынаду; Gdańsk; 2016; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 27000 ± 1100 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 2700 ± 110 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 12000 ± 1800 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 1200 ± 180 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → высушаныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 21000 ± 1400 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → высушаныя#; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 2100 ± 140 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 14000 ± 2200 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 2700 ± 1000 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 3200 ± 1800 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 320 ± 180 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 1500 ± 800 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 150 ± 80 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → высушаныя (да парашку) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 2500 ± 1400 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → высушаныя (памолатыя) → мацэраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
- total K
- 250 ± 140 mg/kg; разлік аўтараў; у пераліку на вільготную масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → глыбока замарожаныя → бланшыраваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 8800 ± 1200 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; шапачкі; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; ножкі; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя пладовыя целы; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; вільготная маса
Boletus edulis; аб’яднаны доследны матэрыял; цэлыя грыбы; свежыя → глыбока замарожаныя → бланшыраваныя → марынаваныя; наваколле вёскі Осек у Тухольскіх барах, поўнач цэнтральнай Польшчы; 2015; сухая маса
- total K
- 3200 ± 850 mg/kg; разлік аўтараў; у пераліку на сухую масу.[22]
Boletus edulis; рознічныя марынаваныя грыбы без марынаду; прамыслова марынаваныя і адцэджаныя; Gdańsk; 2016; сухая маса
Boletus edulis; рознічныя марынаваныя грыбы без марынаду; прамыслова марынаваныя і адцэджаныя; Gdańsk; 2016; вільготная маса
Экалагічныя даследаванні
Асяроддзе, рэгіён і сезон
Doświadczenie szklarniowe przeprowadzone na wyspie Bute w Szkocji potwierdziło tworzenie mikoryzy przez Imleria badia na siewkach sosny zwyczajnej (Pinus sylvestris). Nasiona wysiano 20 kwietnia 2024 roku, inokulację przeprowadzono 30 lipca, a ocenę systemu korzeniowego wykonano w listopadzie. Doświadczenie obejmowało 20 siewek w każdym wariancie (do szczegółowej analizy losowano po 10), hodowanych na sterylizowanym podłożu torf–perlit–wermikulit (1:1:1), przy użyciu pojedynczego izolatu oraz trzech metod zakażania: grzybnią, zarodnikami oraz metodą łączoną.
[29]W próbach inokulacji grzybniowej stosowano wycinek agaru o powierzchni 1 cm², natomiast w wariancie zarodnikowym dawkę odpowiadającą około 0,25 g wysuszonego kapelusza na roślinę. Ocenę korzeni prowadzono na trzech poziomach głębokości (0–4 cm, 4–8 cm i 8–12 cm), analizując po trzy losowe fragmenty korzeni z każdej strefy pod mikroskopem stereoskopowym i świetlnym, z barwieniem błękitem bawełnianym w laktofenolu.
[29]Wytworzone ektomikoryzy miały długość 2–10 mm, były nierozgałęzione lub widlasto (dichotomicznie) rozgałęzione. Młode struktury były białawe, starsze ochrowe do żółtobrązowych. Obserwowano białawe ryzomorfy, gładki lub srebrzysty mufkowaty płaszczyk o budowie plektenchymatycznej oraz sieć Hartiga typu Palmetti. W strzępkach i ryzomorfach nie stwierdzono sprzążek. Tożsamość grzyba potwierdzono testem PCR specyficznym dla Imleria badia (produkt o długości 151 par zasad) w 9 niezależnych mikoryzach; korzenie kontrolne dały wynik negatywny.
[29]Średni wskaźnik kolonizacji korzeni wyniósł 7,8% dla grzybni, 4,3% dla zawiesiny zarodników oraz 7,16% dla metody łączonej. Na poszczególnych głębokościach (0–4 cm, 4–8 cm, 8–12 cm) wartości te kształtowały się odpowiednio: 11,7%, 6,3% i 5,4% przy inokulacji grzybnią; 3,3%, 6,4% i 3,2% przy inokulacji zarodnikami; 7,0%, 9,1% i 5,2% przy zastosowaniu obu metod. W grupie kontrolnej nie wykryto mikoryz Imleria badia, a sporadyczna obecność innego grzyba wyniosła średnio 1,11%, 1,33% i 0,89% (łącznie około 1%).
[29]Test Kruskala–Wallisa wykazał statystycznie istotną różnicę pomiędzy grupami inokulowanymi a kontrolą (χ² = 26,77, df = 3, p = 6,57 × 10⁻⁶). Testy Wilcoxona z poprawką Bonferroniego potwierdziły istotną kolonizację względem kontroli dla inokulum grzybniowego (p = 4 × 10⁻⁶), metody łączonej (p = 0,00077) oraz zarodników (p = 0,00031). Pomiędzy samymi metodami inokulacji nie stwierdzono istotnych różnic statystycznych (p > 0,05). Podobnie głębokość podłoża nie wpływała istotnie na poziom kolonizacji (p = 0,3497, 0,3668 i 0,9994).
[29]Czysta kultura jednego z izolatów tworzyła zaczątki owocników (primordia) na pożywkach MMN i PDA po przeniesieniu z inkubatora o temperaturze 23 °C do warunków laboratoryjnych o temperaturze 14–18 °C na okres kilku tygodni. Badania te dotyczą wczesnych etapów formowania mikoryzy i zawiązków, nie stanowiąc metody komercyjnej uprawy owocników.
[29]Analiza biogeograficzna oparta na bazie danych GBIF objęła 69 737 globalnych rekordów występowania Imleria badia i jej synonimów, z których wyselekcjonowano 34 151 rekordów europejskich zgromadzonych w latach 1970–2024 (1970–2025). Dane te reprezentują zgłoszenia obecności gatunku na stanowiskach.
[29]Месцапражыванне і сустракальнасць
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Крыніцы |
|---|---|---|---|
| Чэхія | Nie ustalono regionów w zapisanych danych | VI–XI |
|
| Польшча | Ніжняя Сілезія (тэрыторыя, пазначаная ў крыніцы) | VI–XI |
|
Матэрыялы
Дакументацыя даследаванняў
- Мікраскапія
- src-cms-badia[13]
- Апісанне смаку
- src-coford 2008-badia[14]
- Колькасны аналіз
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7[22]
- Мікраскапія
- src-snowarski-badia[24]
- Мікраскапія
- src-sutara 2005[27]
- Мікраскапія
- src-thomas 2026[29]
- Пробы з рэактывамі
- Пробы з рэактывамі
- Пробы з рэактывамі
- Пробы з рэактывамі
- Даследаванне спражак
- src-zhu 2014[32]
- Мікраскапія
- src-zhu 2014[32]
- Філагенетычнае даследаванне
- src-zhu 2014[32]
Гербарныя калекцыі
- S-F119691(epitype)
Швецыя; Angermanland,Nordingra; 1993-08-28; A.Strid19707
[32]- HKAS74714
Германія; Marburg; 2006-12-04; Z.L.YangM3
[32]- HKAS53502
Германія; Marburg; 2006-11-24; L.Wang4
[32]- HKAS74713
Італія; Lazio,CaldaradiManziana/Rome; 2010-11-25; M.GelardiMG396a; 265 м над узроўнем мора
[32]- HKAS75797
Італія; Lombardy,Cevo/Brescia; 2012-08-20; M.GelardiMG463a; 1750 м над узроўнем мора
[32]
Крыніцы
- Weryfikacja strukturalnych polskich wyników prawnych, 17.10.2026
- src-cms-badia
- src-coford 2008-badia
- ELI: protection
- ELI: trade
- src-gasecka 2017-access
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7
- src-sf-badia
- src-snowarski-badia
- src-sotek 2025-access
- src-sutara 2005
- src-sutara 2008
- src-thomas 2026
- src-vizzini 2014
- src-zhu 2014