
Essbar

Für den Handel zugelassen
Lege deinen Standort fest, um Daten für deine Region zu sehen.


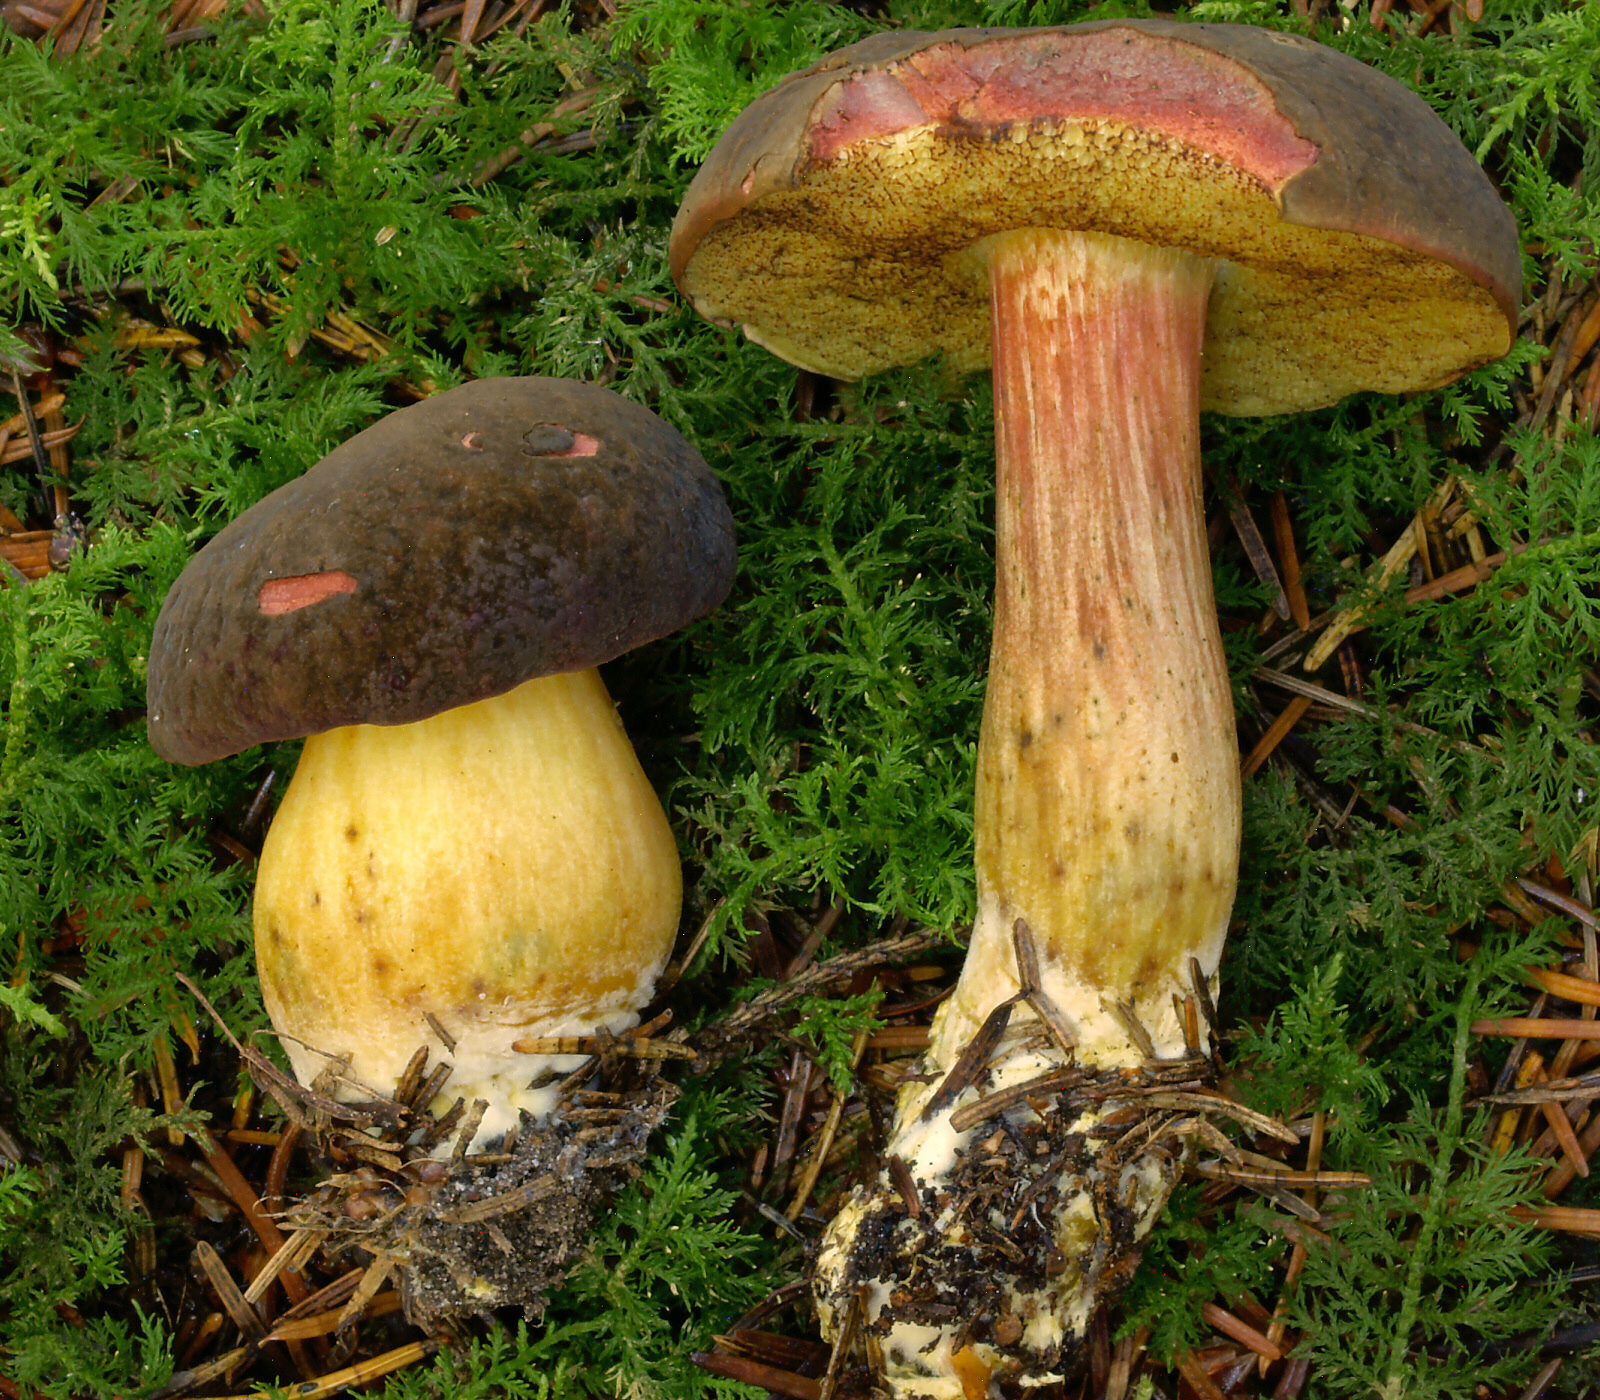
Der Maronen-Röhrling (Imleria badia), auch als Marone bekannt, ist ein häufiger und geschätzter Pilz der polnischen Wälder. Sein kastanien- oder dunkelbrauner Hut ist trocken matt und samtig, bei feuchtem Wetter wird er schlüpfrig. Die gelbliche Hutunterseite blaut auf Druck. Der Stiel ist bräunlich, längsfaserig und ohne Netzzeichnung. Man findet ihn in Nadel- und Laubbäumen, oft in der Nähe von Kiefern und Fichten. Die Fruchtkörper erscheinen ab dem Sommer, am zahlreichsten im Herbst. Er ist ein sehr schmackhafter Speisepilz, der gerne zum Trocknen, Braten und Einlegen gesammelt wird.
Erkennung, Lebensraum und wichtigste Unterschiede.
Pilzsammler
Fruchtkörperaufbau
- Fruchtkörperform
- Fruchtkörperform: Hut, Stiel.
- Konsistenz des gesamten Fruchtkörpers
- Konsistenz des gesamten Fruchtkörpers: fleischig.
- Farbe des Myzels an der Fruchtkörperbasis
- Farbe des Myzels an der Fruchtkörperbasis: weißlich oder cremefarben.
Hut
- Hutform
- bei jungen Fruchtkörpern: Hutform: halbkugelig.
bei reifen Fruchtkörpern: Hutform: gewölbt.
bei alten Fruchtkörpern: Hutform: flach. - Hutoberfläche
- bei Trockenheit: Hutoberfläche: matt, samtig.
bei Nässe: Hutoberfläche: schleimig.
bei Nässe: Hutoberfläche: glänzend. - Hutbedeckung
- bei Trockenheit: Hutbedeckung: filzig oder flockig.
- Hutfarbe
- Hutfarbe: goldbraun.
Hutfarbe: hellbraun.
Hutfarbe: rostfarben.
Hutfarbe: kastanienbraun.
bei reifen Fruchtkörpern: Hutfarbe: gelbbraun.
Hutfarbe: dunkelbraun. - Hutrandhaltung
- bei jungen Fruchtkörpern: Hutrandhaltung: eingerollt.
- Überstand des Hutrandes über den Hymenophor
- Überstand des Hutrandes über den Hymenophor: über den Hymenophor hinausragend.
- Hutdurchmesser
- Der Hutdurchmesser beträgt 30–250 mm.
Hutunterseite
- Hymenophortyp
- Hymenophortyp: Röhren.
Röhren am Stielansatz
- Ansatz des Hymenophors am Stiel
- Ansatz des Hymenophors am Stiel: am Stiel angewachsen (Röhren).
- Profil des Hymenophors am Stiel
- Profil des Hymenophors am Stiel: am Stiel ausgebuchtet (Röhren).
- Einsenkung der Röhrenschicht am Stiel
- Einsenkung der Röhrenschicht am Stiel: am Stiel vertieft.
- Farbe des Hymenophors
- bei jungen Fruchtkörpern: Farbe des Hymenophors: cremefarben.
bei reifen Fruchtkörpern: Farbe des Hymenophors: mattgelb.
bei jungen Fruchtkörpern: Farbe des Hymenophors: blass zitronengelb. - Porenform
- bei reifen Fruchtkörpern: Porenform: unregelmäßig.
Porenform: kantig. - Porenfarbe nach Verletzung
- Porenfarbe nach Verletzung: blau.
Porenfarbe nach Verletzung: Blaugrün.
Porenfarbe nach Verletzung: mattbraun. - Natürliche Porenfarbe
- Natürliche Porenfarbe: hellgelb.
- Natürliche Röhrenfarbe
- Natürliche Röhrenfarbe: hellgelb.
Natürliche Röhrenfarbe: olivgrüngelb.
Stiel und Basis
- Stielposition
- Stielposition: zentral.
- Stielform
- Stielform: zylindrisch.
Stielform: keulenförmig.
bei jungen Fruchtkörpern: Stielform: tonnenförmig.
bei reifen Fruchtkörpern: Stielform: zylindrisch.
bei jungen Fruchtkörpern: Stielform: zylindrisch.
bei reifen Fruchtkörpern: Stielform: keulenförmig. - Stielfarbe
- Stielfarbe: braun.
Stielfarbe: gelbbraun. - Überzug der Stieloberfläche
- Überzug der Stieloberfläche: faserig.
Überzug der Stieloberfläche: faserig oder flockig.
Überzug der Stieloberfläche: schuppig. - Farbe der Stielornamentation
- Farbe der Stielornamentation: braun.
Farbe der Stielornamentation: ockerbraun. - Stielinneres
- Stielinneres: voll.
- Konsistenz des Stiels
- bei reifen Fruchtkörpern: Konsistenz des Stiels: verholzt.
- Stiellänge
- Stiellänge: 30–140 mm.
- Stieldurchmesser
- Stieldurchmesser: 10–50 mm.
- Krümmung des Stiels
- Krümmung des Stiels: gebogen.
Fleisch
- Fleischfarbe
- Fleischfarbe: cremefarben oder zitronengelb (Hutfleisch).
Fleischfarbe: cremefarben oder zitronengelb (Stielfleisch).
Fleischfarbe: hellgelb.
Fleischfarbe: bräunlich (Hutfleisch, unter der Haut). - Festigkeit des Fleisches
- bei jungen Fruchtkörpern: Festigkeit des Fleisches: fest.
bei reifen Fruchtkörpern: Festigkeit des Fleisches: weich (Hutfleisch). - Geschmack des Fleisches
- Geschmack des Fleisches: süß, schwach.
Geschmack des Fleisches: schwach. - Fleischfarbe nach Verletzung
- Fleischfarbe nach Verletzung: blau (Hutfleisch).
im oberen Teil des Stiels: Fleischfarbe nach Verletzung: blau (Stielfleisch).
Fleischfarbe nach Verletzung: blau. - Fleischgeruch
- Fleischgeruch: pilzartig.
Fleischgeruch: schwach.
Wo und wann wächst er
- Lebensraum
- Lebensraum: Nadelwald oder Laubwald.
- Substrat
- Substrat: Boden.
- Wuchsweise der Fruchtkörper
- Wuchsweise der Fruchtkörper: einzeln oder in kleinen Gruppen.
Wuchsweise der Fruchtkörper: in Gruppen. - Vorkommenshäufigkeit
- Vorkommenshäufigkeit: häufig.
- Fruchtzeit
- Die Fruchtkörper erscheinen von Juni bis November.
Die Fruchtkörper erscheinen hauptsächlich von September bis November. - Verbreitungsgebiet
Essbarkeit und Küche
- Speisewert
- Essbar
- Kulinarische Bewertung
- Sehr schmackhaft
Recht
Vorschriften für Standort: Polen
- Schutzstatus
- Die Art steht in Polen nicht unter Artenschutz.
- Handel
- Für den Handel zugelassen
Verwechslungsmöglichkeiten
Boletus edulis
Wichtigste Unterschiede
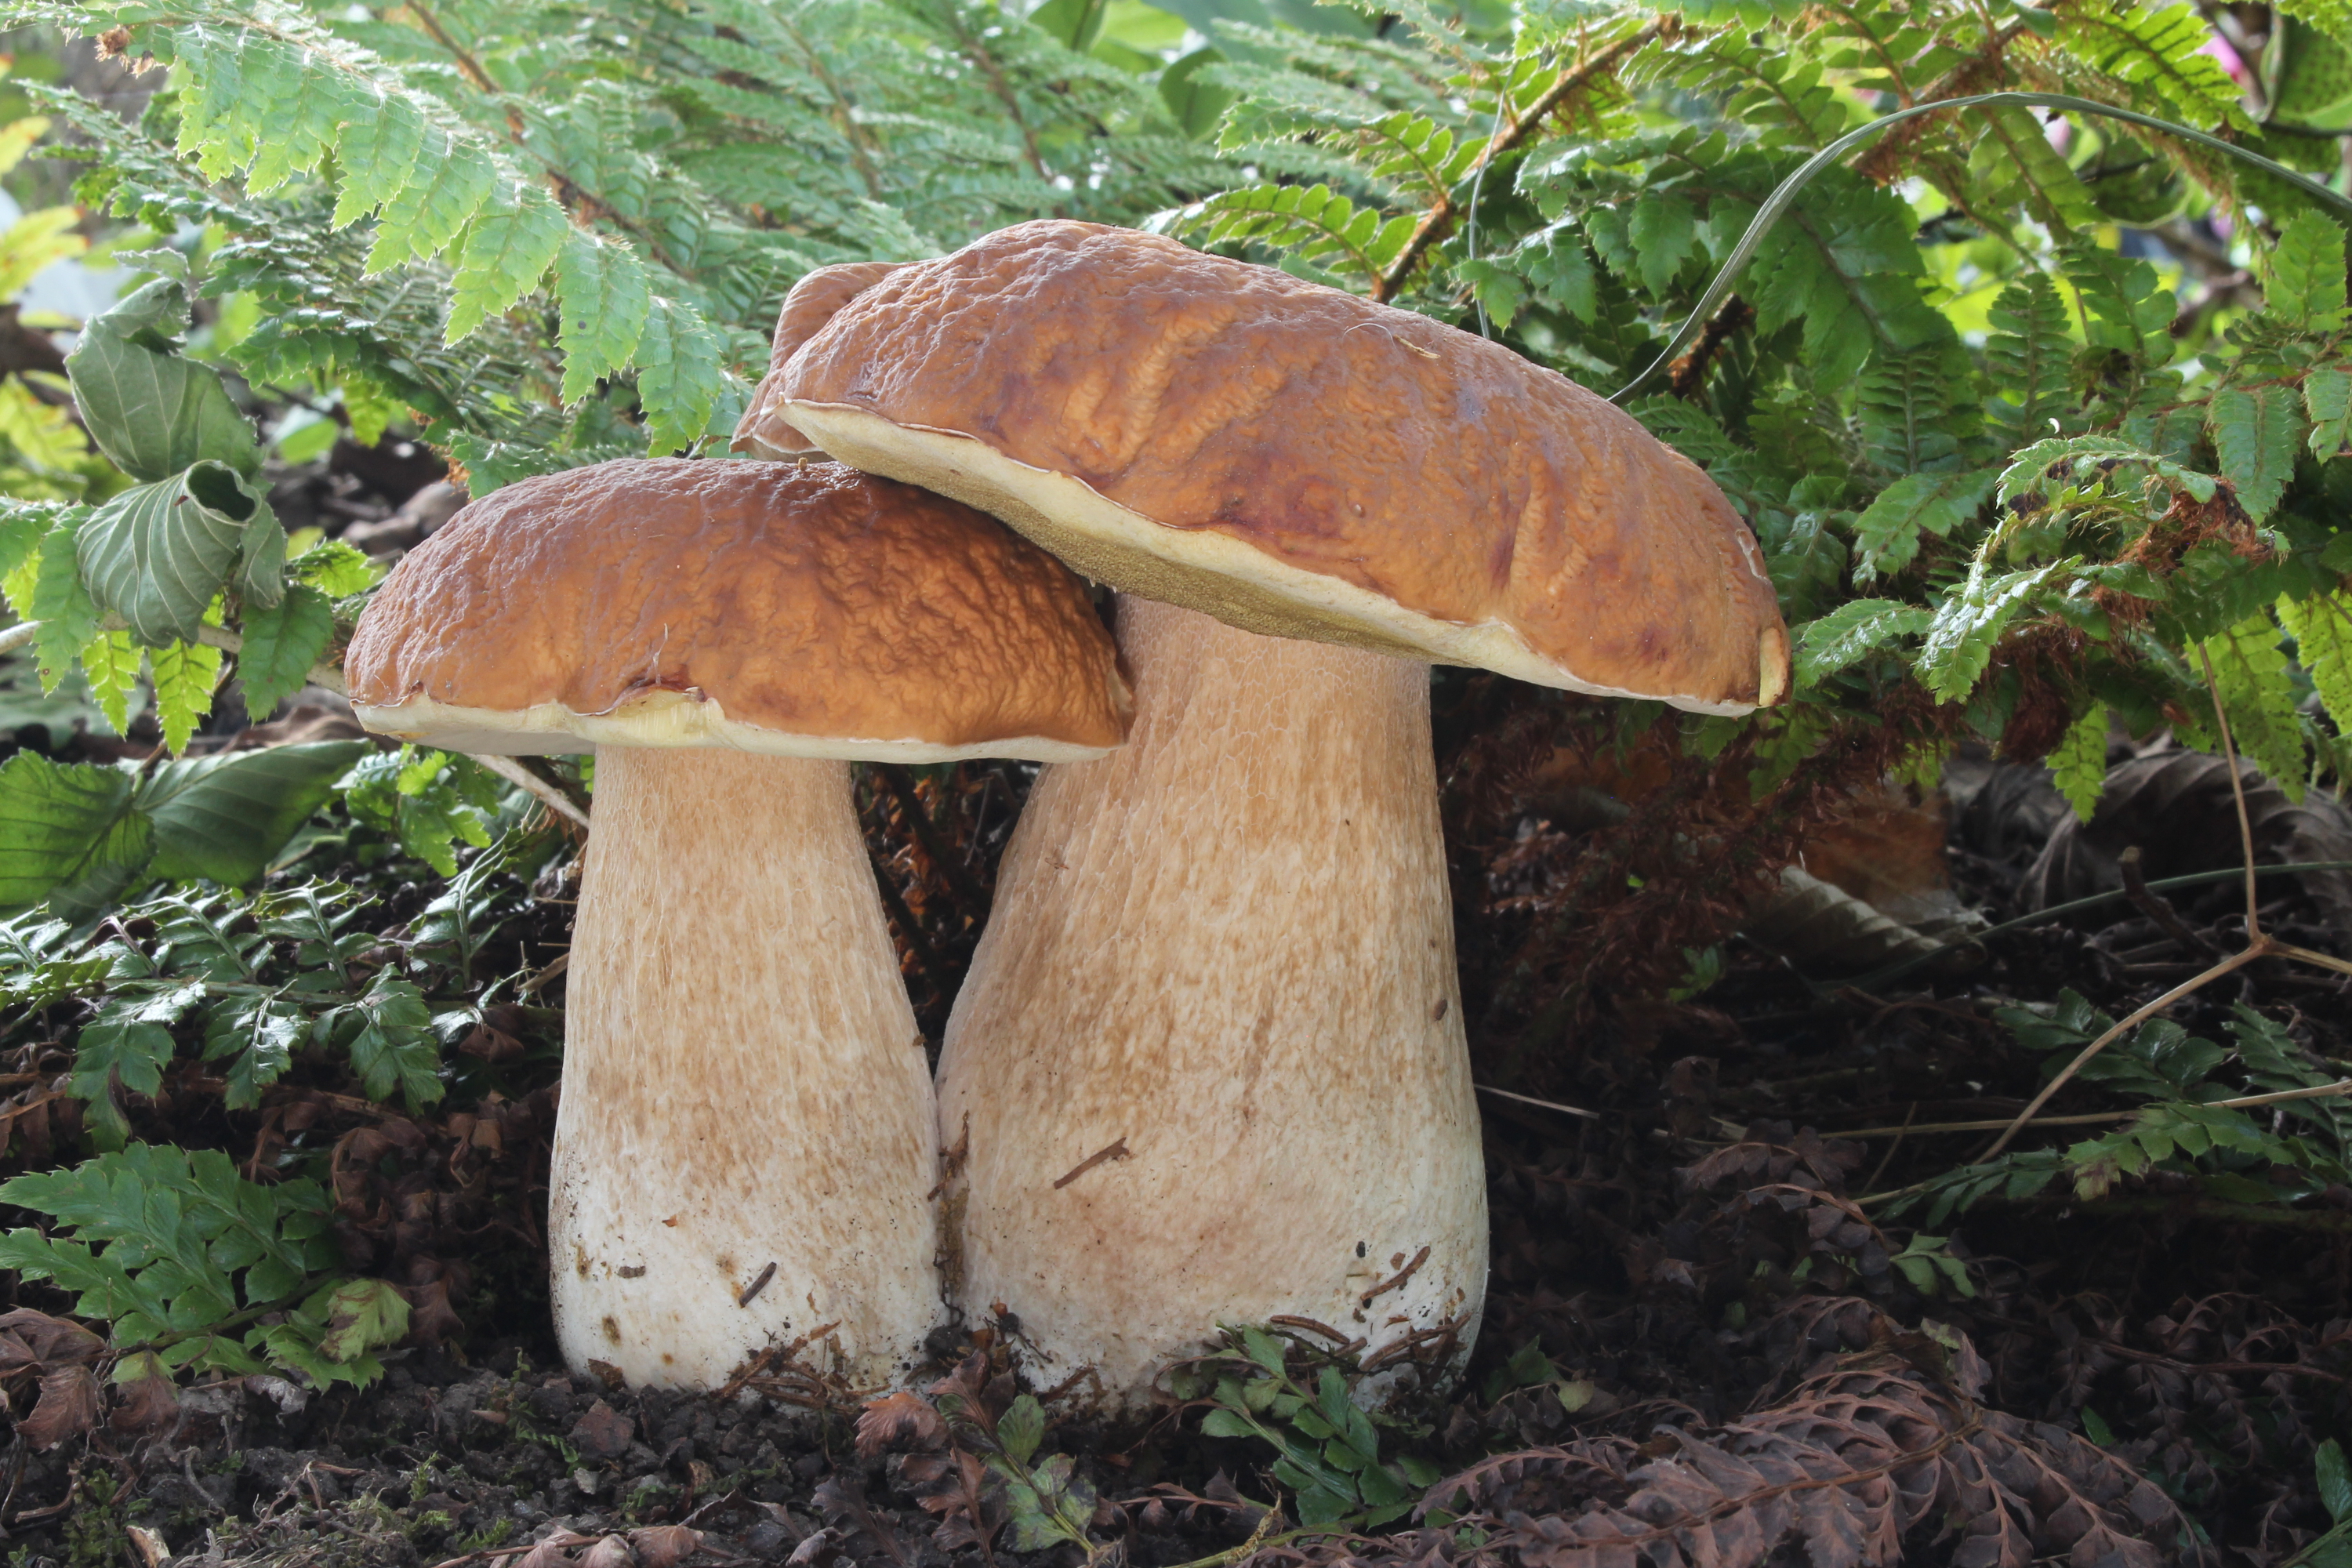
Die Marone (Imleria badia) und der Gemeine Steinpilz (Boletus edulis) sind beliebte Speisepilze. Der Gemeine Steinpilz hat einen Stiel mit hellem Netz sowie anfangs weiße, mit dem Alter gelbe bis gelbolive Poren, die auf Druck ihre Farbe nicht verändern. Sein Fleisch bleibt nach dem Durchschneiden weiß. Die Marone hat einen bräunlichen, netzlosen Stiel, und die Poren blauen auf Druck deutlich. Das Fleisch der Marone bläut nach dem Durchschneiden, insbesondere im Hut und über den Röhren.
Cyanoboletus pulverulentus
Wichtigste Unterschiede
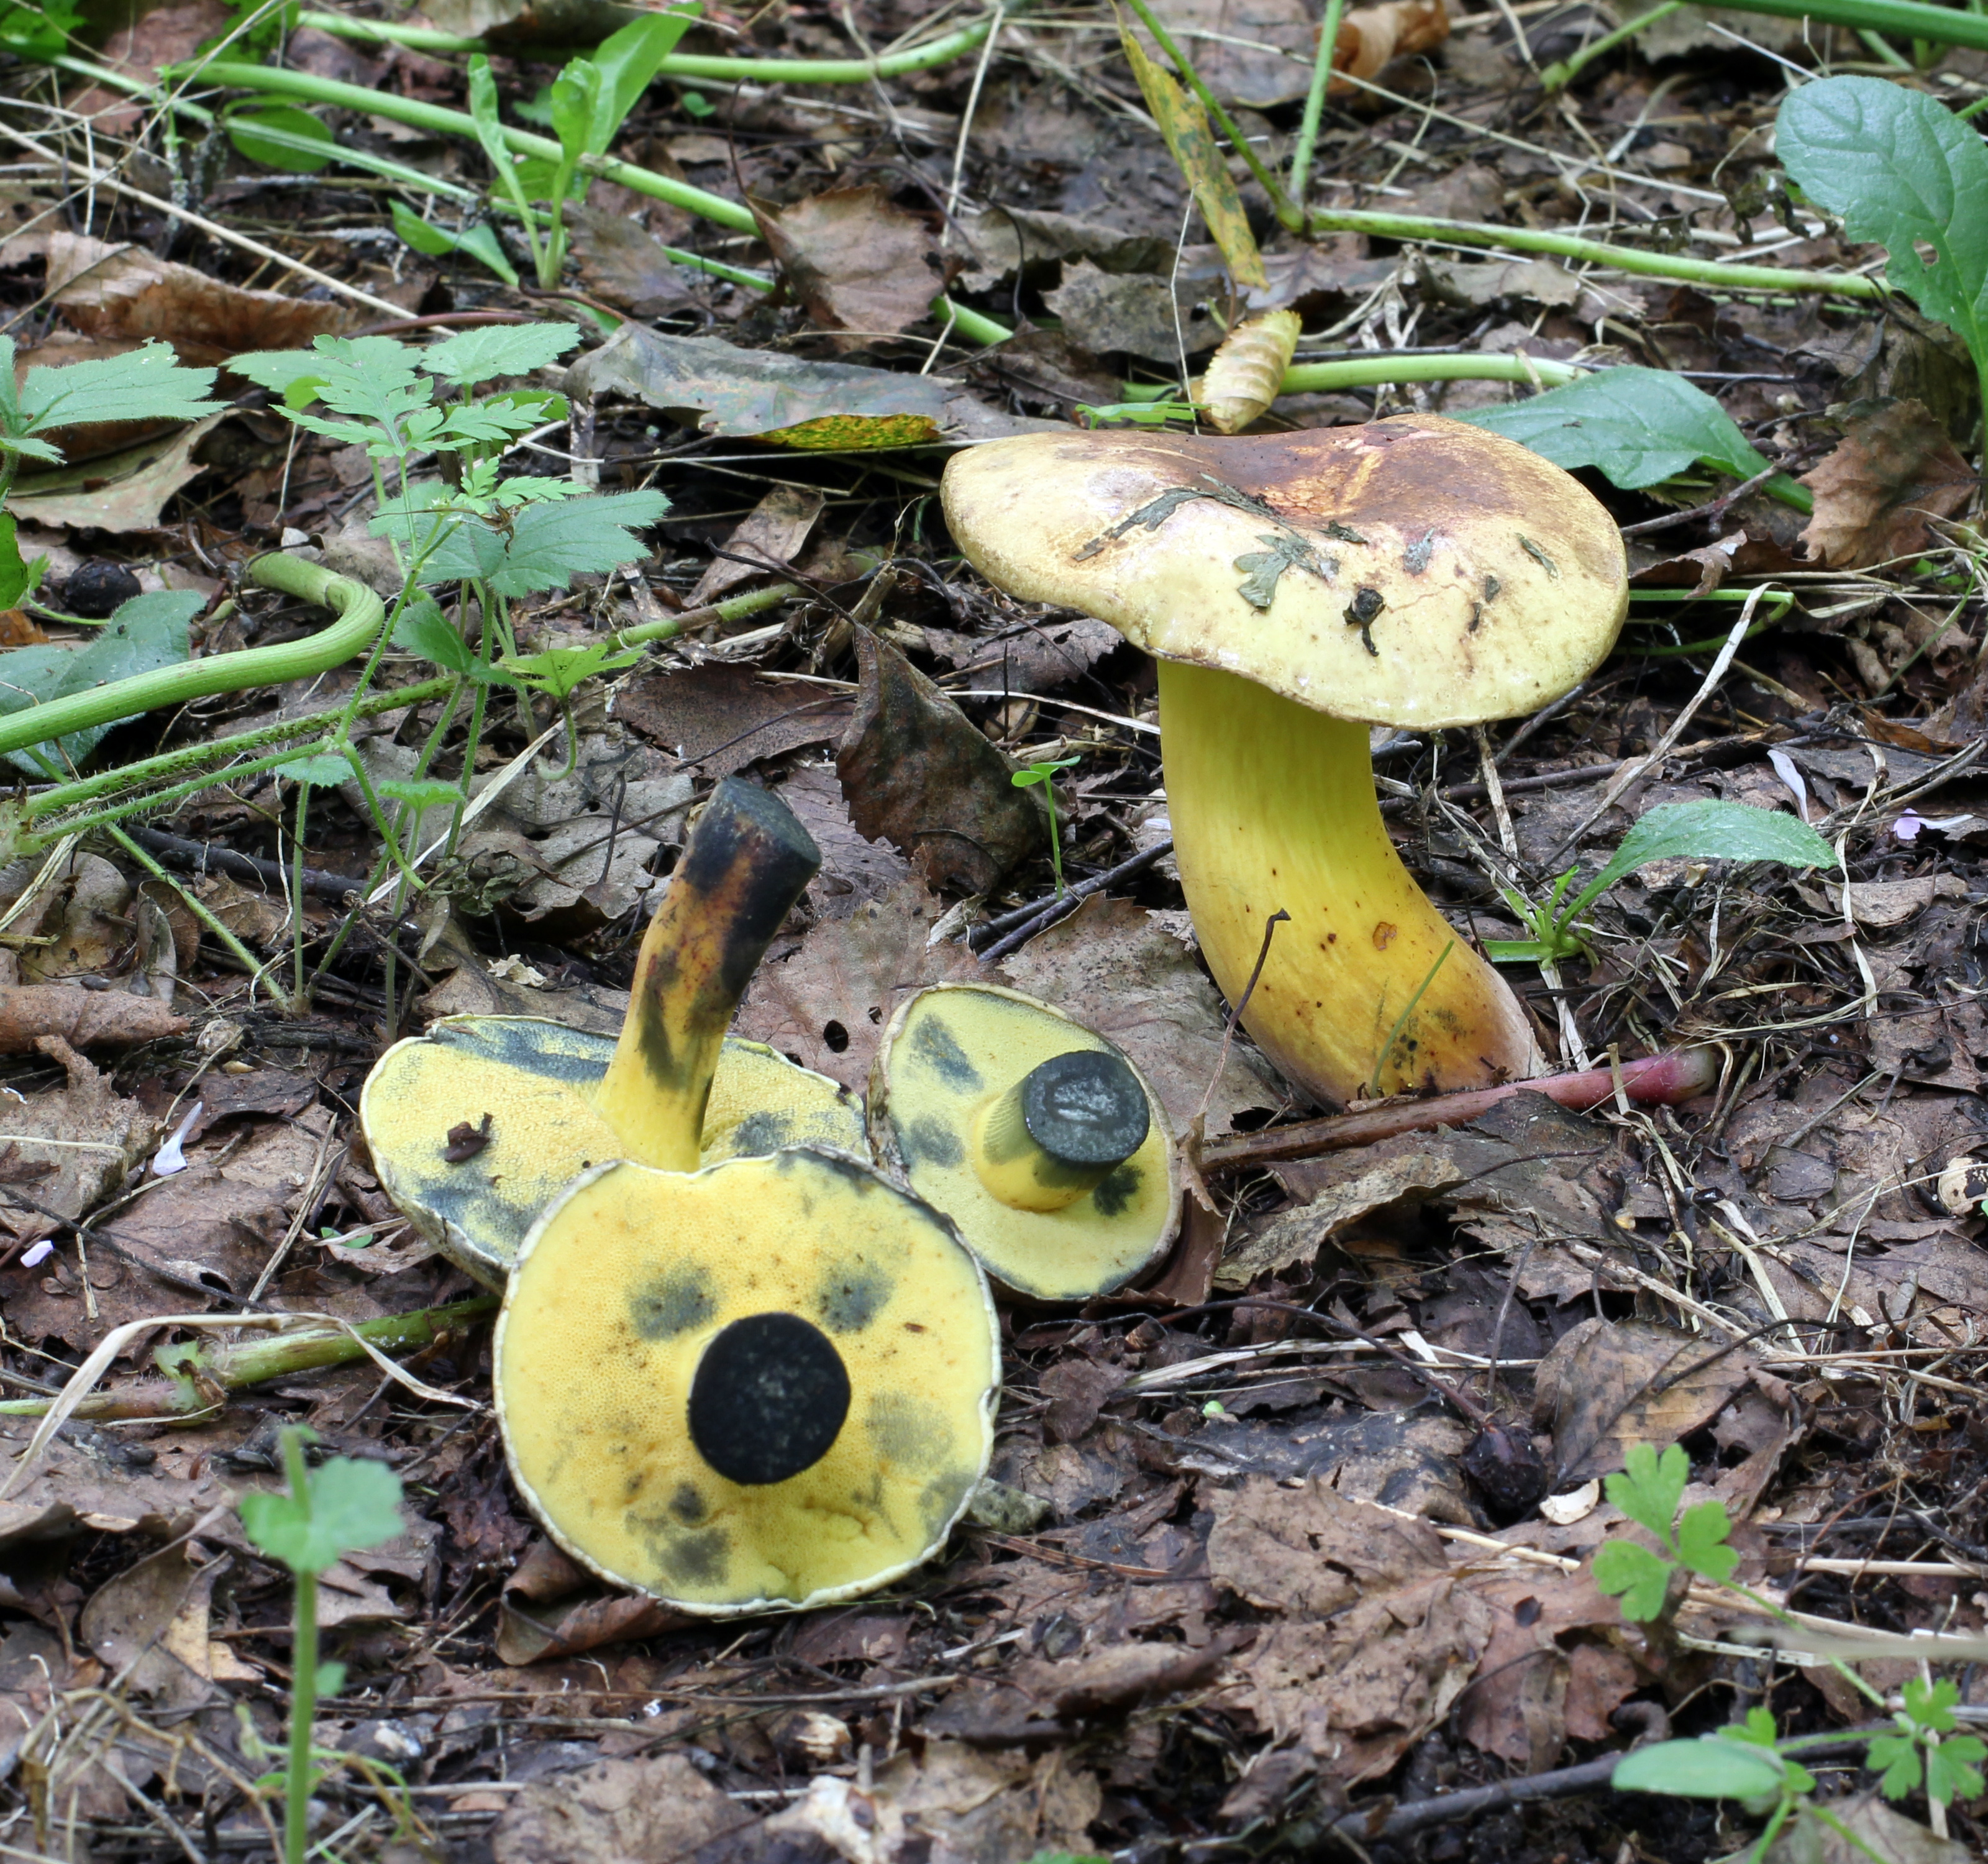
Der Schwarzblauende Röhrling (Cyanoboletus pulverulentus) reagiert auf Berührung und Beschädigung mit einer sofortigen, heftigen und intensiven Verfärbung aller Teile des Fruchtkörpers zu einer tiefen dunkeltintenblauen Farbe. Bei Imleria badia ist das Bläuen weniger gleichmäßig und konzentriert sich vor allem über den Röhren sowie im oberen Teil des Stiels.
Tylopilus felleus
Wichtigste Unterschiede
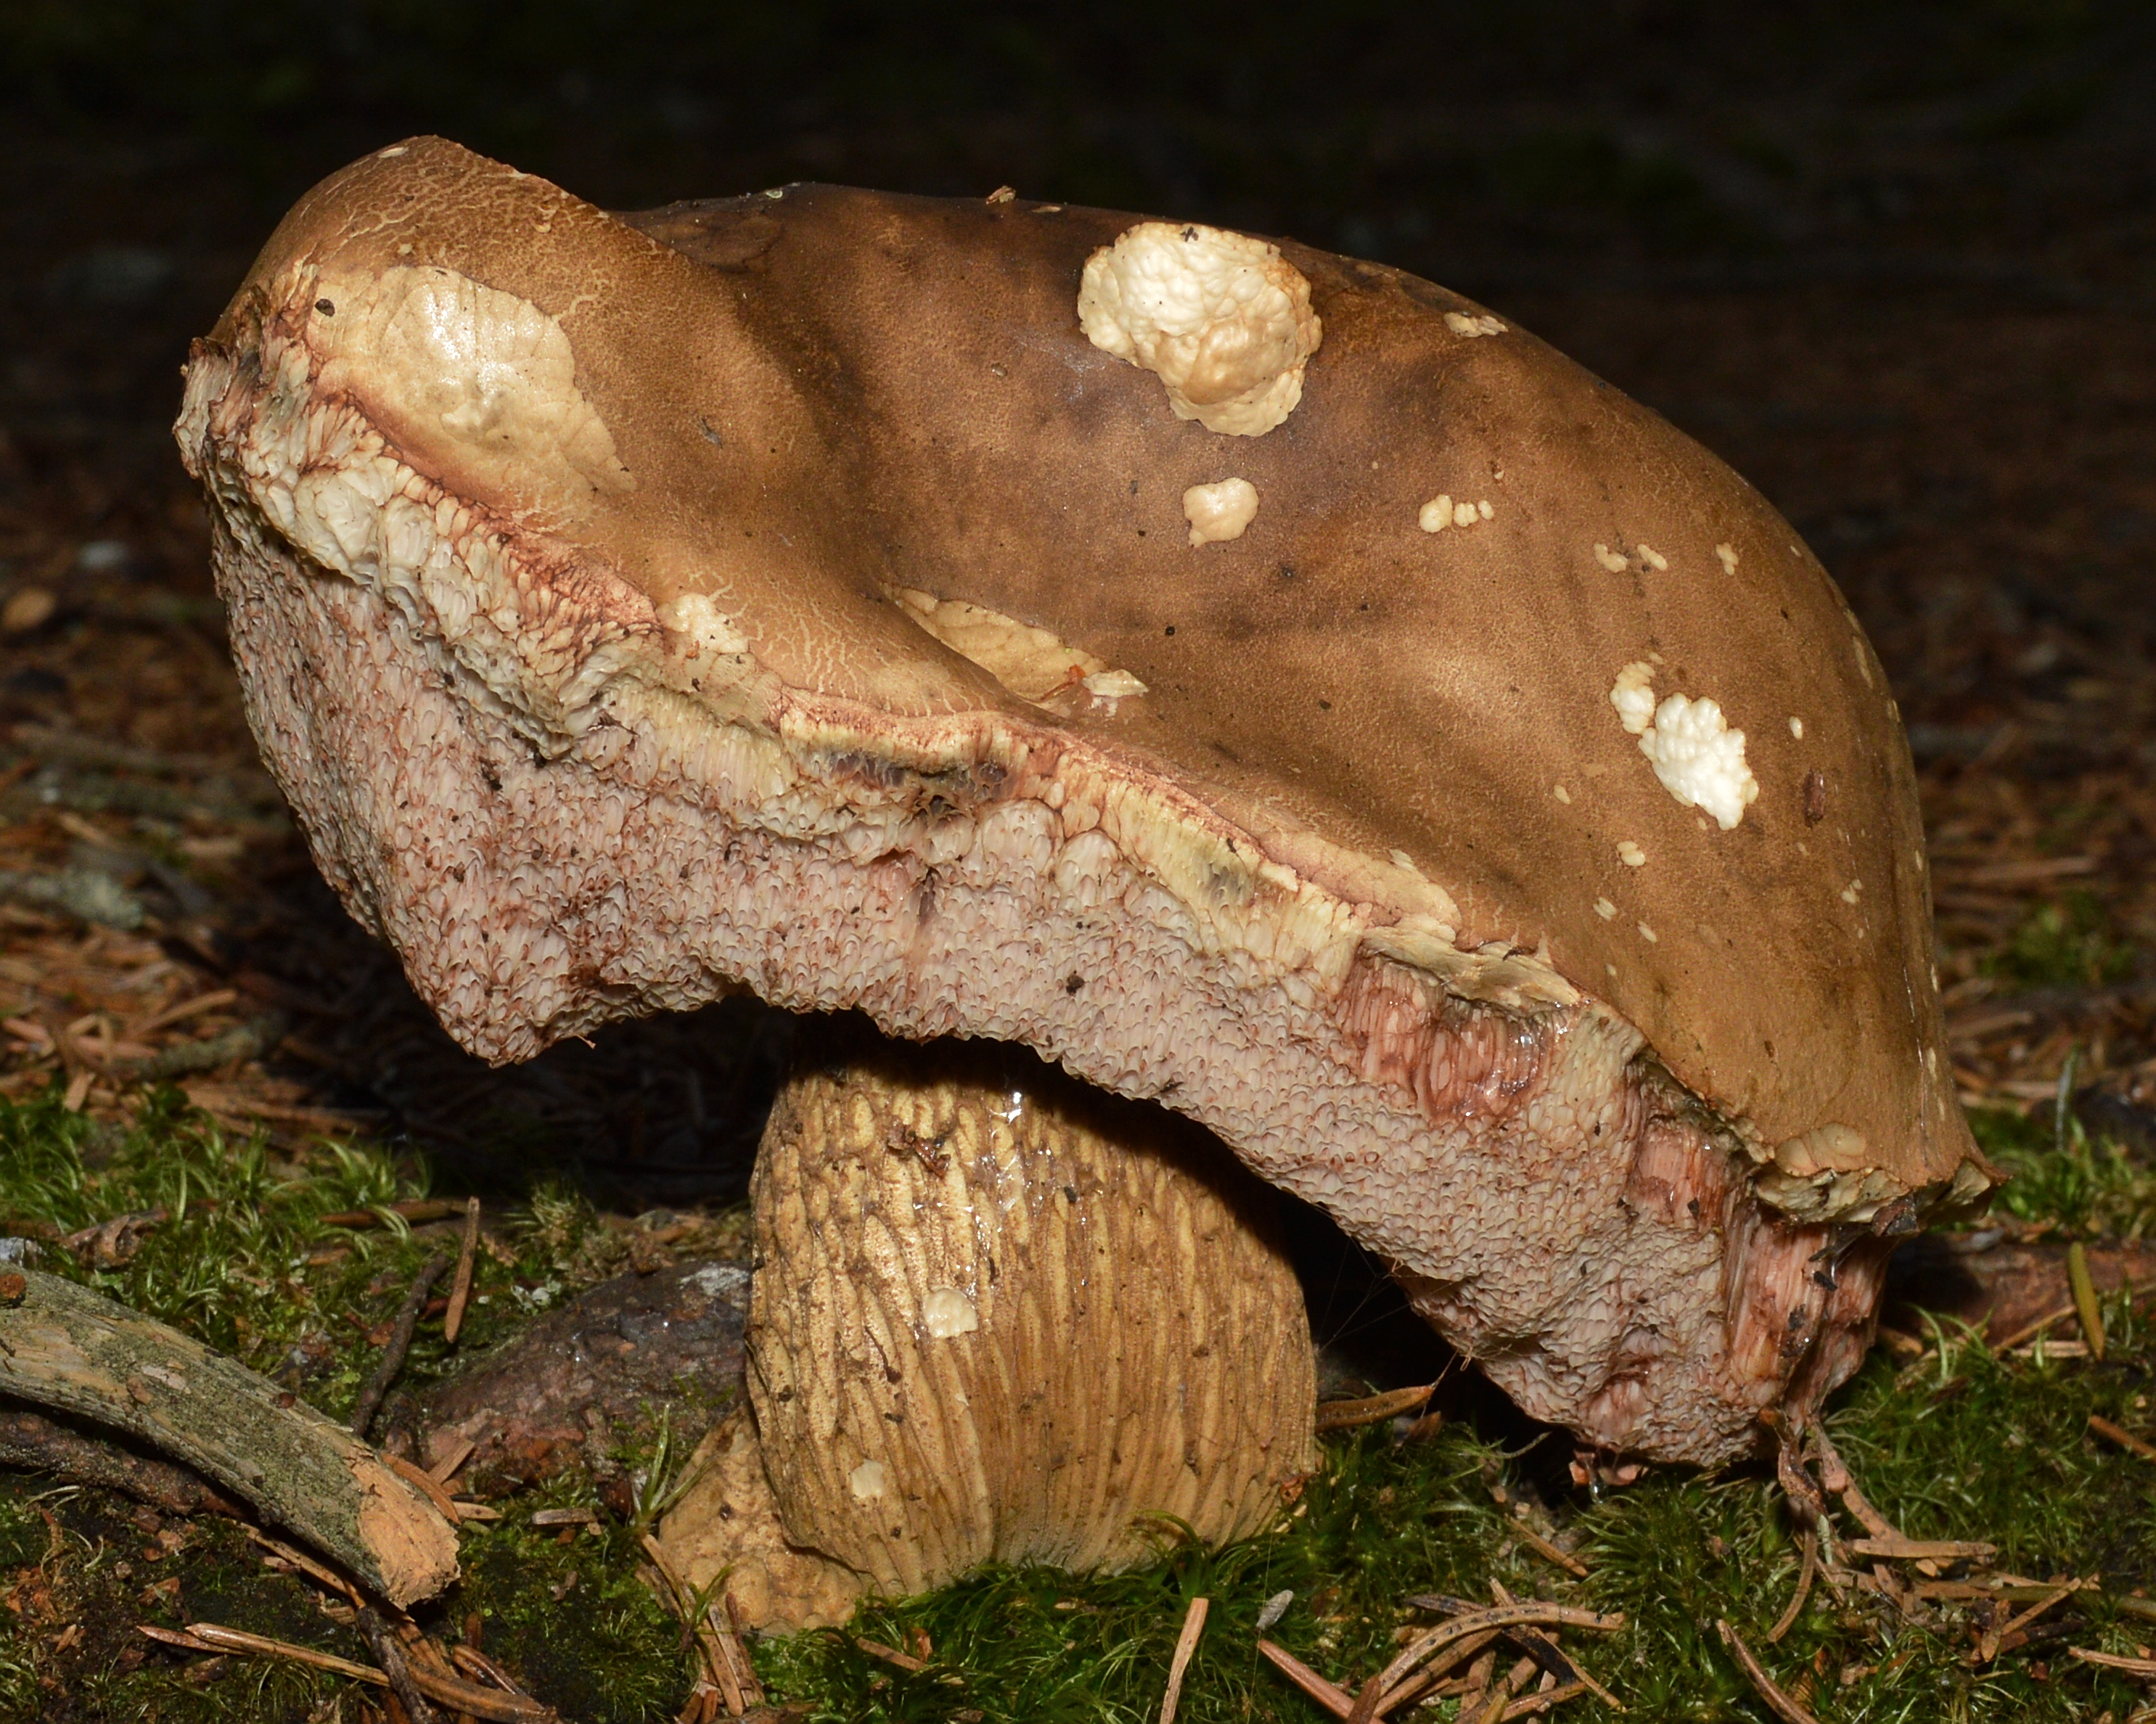
Der Gemeine Gallenröhrling (Tylopilus felleus) hat anfangs weiße, mit zunehmendem Alter rosa werdende Poren und Röhren, eine ausgeprägte dunkle Netzzeichnung am Stiel und einen stark bitteren Geschmack des Fleisches, was ihn ungenießbar macht.
Die Marone (Imleria badia) wird mitunter mit jungen, dunkleren Fruchtkörpern des Gallenröhrlings verwechselt. Die Marone besitzt jedoch gelbliche Röhren (beim Gallenröhrling sind sie weißlich bis rosa), und der Stiel weist nicht das für den Gallenröhrling charakteristische dicke, dunkle Netz mit erhabenen Maschen auf.
Xerocomellus pruinatus
Wichtigste Unterschiede
Der Bereifte Rotfußröhrling (Xerocomellus pruinatus) kann dem Maronen-Röhrling in der Hutfarbe ähneln.
FAQ
Wie unterscheidet man den Maronen-Röhrling vom Gallenröhrling?
Der Gallenröhrling hat ein deutliches dunkles Netzmuster am Stiel und mit dem Alter rosa werdende, nicht blauende Röhren. Die Marone hat kein Netzmuster am Stiel, und ihre Röhren sind gelblich und blauen bei Druck sofort.
Blaut der Maronen-Röhrling?
Ja. Die Röhren blauen bei Druck sofort deutlich, und das Fleisch blaut über den Röhren. Dies ist eine natürliche Oxidationsreaktion von Farbstoffen; sie stellt keinen Mangel oder Gift dar und verschwindet nach der Wärmebehandlung.
Kann man den Maronen-Röhrling im Garten anbauen?
In der Praxis nicht. Es ist ein strikt mykorrhizaler Pilz – er erfordert eine lebende Symbiose mit Baumwurzeln (hauptsächlich von Kiefern). Im Handel verkaufte 'Gartenmyzelien' bringen im Garten so gut wie nie echte Ernten hervor.
Wo sucht man nach dem Maronen-Röhrling?
Vor allem in Kiefern- und Fichtenwäldern, seltener unter Eichen oder Buchen. Er mag saure, sandige Böden, grüne Moosteppiche sowie Ränder von Heidekrautflächen und bildet Mykorrhizen mit Bäumen.
Sind 'podgrzyb brunatny' und 'podgrzybek brunatny' dieselbe Art?
Ja, es ist derselbe Pilz (Imleria badia). 'Podgrzyb' ist die offizielle mykologische Form, und 'podgrzybek' ist der traditionelle Name der Pilzsammler. In alten Atlanten wurde er als Boletus badius und Xerocomus badius geführt.
Wann wächst der Maronen-Röhrling in Polen?
Die Hauptsaison fällt in den Herbst: von September bis Ende Oktober, insbesondere nach ergiebigen Regenfällen und kühleren Nächten. Erste Exemplare finden sich ab Juni, und die Fröste beenden die Saison.
Deutet ein schlüpfriger Hut der Marone auf Verderb hin?
Nein. Bei Regen wird die Huthaut des Maronen-Röhrlings von Natur aus klebrig und schleimig, während sie bei Trockenheit matt ist. Auf Verderb weisen erst schwammiges, weiches Fleisch, weißer Schimmelbelag oder ein modriger Geruch hin.
Liebhaber
Hutunterseite
- Porendurchmesser
- Porendurchmesser: 0,5–1,5 mm.
- Röhrenlänge
- Röhrenlänge: bis 20 mm.
- Struktur der Poren
- Struktur der Poren: zusammengesetzt (Röhren).
Namen und Geschichte
- Obowiązująca nazwa krajowa
- podgrzyb brunatny
- Obowiązująca nazwa taksonomiczna
- Imleria badia (Fr.) Vizzini
- Inne nazwy krajowe
- czarny łebek, czarny łepek, podgrzyb, podsosnówka
- Dawne nazwy krajowe
- podgrzybek brunatny
Heimische Beobachtungen
Sporenabwurf
- Benötigte Materialien
- frischer, reifer Hut, Blatt Papier, Glas oder Schälchen, Wasser
- Zeit
- 2–24 h
- Durchführung
- Den Hut mit der Unterseite auf das Papier legen.
- Einen Tropfen Wasser auf die Oberseite geben und abdecken.
- Nach 2–24 Stunden den Hut anheben und den Niederschlag betrachten.
Wonach gesucht werden soll
- Sporenpulverfarbe
- Sporenpulverfarbe: braun.
- Farbton des Sporenpulvers
- Farbton des Sporenpulvers: olivenbraun.
Unter dem Mikroskop
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Wasser, Sporen aus dem Sporenabwurf
- Durchführung
- Mit einer Nadel etwas Sporenabwurf auf den Objektträger übertragen.
- Einen Tropfen Wasser hinzufügen, mit dem Deckglas abdecken und die Sporen betrachten.
Wonach gesucht werden soll
- Sporenmaße
- Länge 11–18 µm, Breite 4–6 µm.
Maße erst nach Kalibrierung der Mikrosk解读enskala vergleichen.
Reagenzientests
- Benötigte Materialien
- Lichtmikroskop, Objektträger und Deckglas, Nadel, Sporen aus dem Sporenabwurf, fertige 5%ige KOH-Lösung, Filtrierpapier, Schutzbrille und Handschuhe für die Arbeit mit KOH
- Durchführung
- Etwas Sporenmaterial aus dem Sporenabwurf auf einen sauberen Objektträger übertragen.
- Einen Tropfen der fertigen 5%igen KOH-Lösung zugeben und mit einem Deckglas abdecken.
- Überschüssige Flüssigkeit am Rand des Deckglases mit Filtrierpapier entfernen. Die Sporenfarbe unter dem Mikroskop betrachten.
Wonach gesucht werden soll
- Sporenfarbe in 5% KOH
- blass olivbraun
Ökologie und Verbreitung
- Bodenreaktion
- Bodenreaktion: sauer.
- Bodenart nach Korngröße
- Bodenart nach Korngröße: sandig.
- Laubbäume in der Umgebung
- Laubbäume in der Umgebung: Eiche.
Laubbäume in der Umgebung: Erle.
Laubbäume in der Umgebung: Esskastanie.
Laubbäume in der Umgebung: Hainbuche.
Laubbäume in der Umgebung: Buche. - Nadelbäume in der Umgebung
- Nadelbäume in der Umgebung: Fichte.
Nadelbäume in der Umgebung: Tanne.
Nadelbäume in der Umgebung: Kiefer.
Nadelbäume in der Umgebung: Hemlocktanne.
Nadelbäume in der Umgebung: Douglasien.
Nadelbäume in der Umgebung: Lebensbäume. - Krautschichtpflanzen in der Umgebung
- Krautschichtpflanzen in der Umgebung: Moose.
- Mykorrhizapartner
- Gewächshausversuch, Schottland, Insel Bute, Vereinigtes Königreich, 2024, Fruchtkörperbildung im Freiland unbestätigt: Mykorrhizapartner: Pinus sylvestris (kontrollierter Versuch).
Allgemeine Artbeziehung: Mykorrhizapartner: Pinus (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Picea (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Tsuga (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Fagus (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Quercus (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Castanea (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Abies alba (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Pseudotsuga menziesii (allgemeine Partnerliste).
Allgemeine Artbeziehung: Mykorrhizapartner: Carpinus betulus (allgemeine Partnerliste).
Geschichte und Kultur
Die Marone nimmt einen wichtigen Platz in der Pilzsammeltradition Mitteleuropas sowie in der Geschichte der mykologischen Taxonomie ein. In der polnischen Volks- und Regionalnomenklatur gab es zahlreiche traditionelle Bezeichnungen, die sich auf das Aussehen der Fruchtkörper bezogen, wie „czarny łepek“, „kasztaniak“, „grzyb gniady“ (in Anlehnung an die dunkelbraune Hutfarbe) oder „siniak“ (bezogen auf das Phänomen des Blauwerdens verletzter Röhren und des Fleisches).
In der Geschichte der wissenschaftlichen Mykologie durchlief die Art eine Reihe wesentlicher klassifikatorischer Veränderungen, welche die Evolution der Systematik der Röhrenpilze widerspiegeln. Ursprünglich fasste Elias Magnus Fries dieses Taxon im Jahr 1818 als Boletus castaneus β badius auf. Anschließend fungierte sie viele Jahrzehnte lang in der mykologischen Literatur in der Gattung Xerocomus als Xerocomus badius, in die sie Édouard-Jean Gilbert im Jahr 1931 eingliederte. Im Jahr 2014 schuf der italienische Mykologe Alfredo Vizzini auf der Grundlage moderner molekularer phylogenetischer Untersuchungen die neue Gattung Imleria (benannt zu Ehren des belgischen Forschers Louis Imler) und überführte das betreffende Taxon unter dem Namen Imleria badia dorthin, was seine eigenständige evolutionäre Stellung innerhalb der Familie Boletaceae bestätigte.
Essbarkeit und Sicherheit
Die Marone (Maronen-Röhrling) ist ein geschätzter Speisepilz mit einem feinen, angenehmen Aroma und einem milden Geschmack mit spürbarer Waldnote. Eine zwingende Voraussetzung für den sicheren Verzehr dieser Art ist eine thermische Behandlung der Fruchtkörper – Kochen, Braten oder Schmoren. Es ist zu betonen, dass das Trocknen der Fruchtkörper lediglich eine Methode zur Haltbarmachung des Rohstoffs darstellt und die thermische Behandlung nicht ersetzt; getrocknete Pilze müssen vor dem Verzehr ebenfalls gekocht oder einer anderen geeigneten Hitzebehandlung unterzogen werden. Der rohe oder unzureichend gegarte Verzehr von Fruchtkörpern birgt das Risiko von Verdauungsstörungen.
Ein spezifisches und wichtiges gesundheitliches Sicherheitsthema im Zusammenhang mit dieser Art ist ihre hohe Fähigkeit zur Anreicherung von radioaktiven Elementen und Metallen. In im Jahr 2026 veröffentlichten Untersuchungen (Roczniki Państwowego Zakładu Higieny) wurde eine deutliche Akkumulation von Radiocäsium (Cäsium-137) in Fruchtkörpern der Marone aus kontaminierten Waldgebieten dokumentiert. Daher wird zu besonderer Vorsicht geraten und das Sammeln von Pilzen in Gebieten mit historischer radioaktiver Kontamination zu vermeiden. Für den Verzehr ungeeignet sind auch alte und überreife Fruchtkörper.
Wichtigste Inhaltsstoffe und ihre Wirkung
Norbadion A und Cäsium
Podgrzybek brunatny zawiera norbadion A – barwnik wykazujący zdolność do silnego wiązania i kumulowania kationów cezu, w tym promieniotwórczego izotopu ¹³⁷Cs. Stopień akumulacji radionuklidów zależy od lokalnego skażenia podłoża i opadu promieniotwórczego na danym stanowisku.
Lebensraum und Vorkommen
Die Marone (Imleria badia) zeichnet sich durch ein breites geografisches Verbreitungsgebiet auf der Nordhalbkugel aus. Gemäß einer biogeografischen und phylogenetischen Revision (Zhao et al., 2014) kommt diese Art in Europa, Nordamerika und wahrscheinlich in Ostasien vor.
Diese Art besiedelt vor allem Nadel- und Mischwälder und ist vereinzelt auch in Laubbaumbeständen anzutreffen. Sie bildet Mykorrhiza-Beziehungen mit verschiedenen Baumarten, unter anderem mit der Waldkiefer, der Gemeinen Fichte, der Lärche sowie der Rotbuche und Eichen. Sie benötigt saure, calciumcarbonatarme und durchlässige Böden. Die Fruchtkörper wachsen auf sandigen Böden, inmitten dicker Nadelstreuschichten, in Moospolstern, auf Heidelandschaften sowie auf stark vermulmtem Holz und morschen Stümpfen von Nadelbäumen.
Gemäß den dokumentierten phänologischen Daten für Polen und Tschechien (Tabellen PL und CZ) umfasst die Fruchtbildungszeit der Marone den Zeitraum von Juni bis November (Monate VI–XI). Die regionale Differenzierung des Vorkommens der Fruchtkörper hängt hauptsächlich vom Vorhandensein von Nadel- und Mischwäldern auf nährstoffarmen, sauren Sandböden ab.
Lebensraum, Gebiet und Jahreszeit
W Czechach grzyb ten rośnie bardzo licznie od czerwca do listopada, niekiedy do początku zimy, przede wszystkim pod świerkami, a w drzewostanach liściastych głównie pod dębami. Owocniki nie wykazują odporności na mróz.
Gatunek jest szeroko rozprzestrzeniony w Europie i Ameryce Północnej, od nizin po regiel górny i granicę lasu. Jako partnerów mikoryzowych wymienia się drzewa iglaste z rodzajów Abies, Picea, Pinus, Pseudotsuga, Thuja i Tsuga, a także liściaste z rodzajów Alnus, Castanea, Carpinus, Fagus i Quercus. Dane molekularne ITS wskazują również na prawdopodobne występowanie w Azji Wschodniej i Afryce Południowej.
Forscher
Essbarkeit und Küche
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Speisewert
- Essbar — źródło oznaczenia
Źródło bez opisu bibliograficznego · Retained UTF-8 HTML, line 554; jadalne czy trujące?
- Kulinarische Bewertung
- Sehr schmackhaft
Źródło bez opisu bibliograficznego · Retained windows-1250 HTML, line 129; Kuchyňské využití
- Handel
- Für den Handel zugelassen
Obszar: PL
Zał.1 lp.50; pozostałe wymagania aktu, w tym atest, zachowane.
W Polsce jest dopuszczony do obrotu handlowego oraz do produkcji przetworów grzybowych.
Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U.2026 poz.258 · PDF str.2–3: § 2–6; str.5–7: zał.1 lp.1–72; status ELI obowiązujący
Wissenschaftliche Namen und Taxonomie
- Gültiger wissenschaftlicher Name
Imleria badia (Fr.) Vizzini
- Frühere wissenschaftliche Namen
- 1818 — Boletus castaneus β badius Fr.
1821 — Boletus badius (Fr.) Fr.
1828 — Boletus castaneus var. badius (Fr.) Fr.
1836 — Boletus glutinosus Krombh.
1838 [1836–1838] — Boletus vaccinus Fr.
1874 [1874–1875] — Boletus limatulus Frost
1881 — Rostkovites badius (Fr.) P. Karst.
1882 — Tubiporus vaccinus (Fr.) P. Karst.
1882 — Tubiporus vaccinus var. ebulbis Fr. ex P. Karst.
1886 — Dictyopus aereus var. vaccinus (Fr.) Quél.
1886 — Viscipelles badia (Fr.) Quél.
1888 — Ixocomus badius (Fr.) Quél.
1898 — Suillus badius (Fr.) Kuntze
1898 — Suillus limatulus (Frost) Kuntze
1898 — Suillus vaccinus (Fr.) Kuntze
1912 [1911] — Boletus badius var. glutinosus (Krombh.) Smotl.
1931 — Xerocomus badius (Fr.) E.-J. Gilbert
1945 — Xerocomus badius var. limatulus (Frost) Snell
1960 — Xerocomus badius f. labyrinthicus Wichanský
1976 — Boletus badius var. glaber Grund & K.A. Harrison
1976 — Boletus badius var. macrostipitatus Grund & K.A. Harrison
2007 — Xerocomus badius f. vaccinus (Fr.) Klofac
2016 — Imleria badia f. vaccina (Fr.) Klofac
2018 — Imleria badia var. limatula (Frost) Blanco-Dios[23]
Obecnie przyjęta nazwa naukowa to Imleria badia (Fr.) Vizzini. Gatunek należy do rodziny Boletaceae, rzędu Boletales oraz klasy Agaricomycetes. Bazonimem jest Boletus castaneus β badius Fr. z 1818 roku. Alfredo Vizzini utworzył rodzaj Imleria i opublikował nową kombinację 12 maja 2014 roku w Index Fungorum 147; taksonomiczne numery rejestracyjne to odpowiednio 550568 i 550569.
[23] [30] [32]W dawniejszym piśmiennictwie podgrzybek brunatny opisywany był głównie jako Boletus badius oraz Xerocomus badius. Dla nazwy Boletus badius rejestr Species Fungorum podaje rok 1821, rewizja Zhu i współautorów wskazuje 1828, a atlas czeski – 1832, przy czym źródła te wymieniają odmienne publikacje pierwotnego opisu. W przypadku nazwy Imleria badia wszystkie trzy opracowania zgodnie podają autorstwo Vizziniego z 2014 roku. Z kolei przy Boletus castaneus var. badius Species Fungorum podaje rok 1828, natomiast rewizja wskazuje 1821.
[23] [32] [13]Rewizja przeprowadzona przez Zhu i współautorów w 2014 roku wyodrębniła rodzaj Imleria z wąsko ujmowanych rodzajów Xerocomus, Xerocomellus i Boletus. W obrębie Imleria wyróżniono cztery gatunki: Imleria badia, Imleria obscurebrunnea, Imleria parva oraz Imleria subalpina. Dawniejsze chińskie doniesienia pod nazwą Boletus badius odnosiły się do trzech pozostałych gatunków, stąd ich dane morfologiczne i ekologiczne nie dotyczą bezpośrednio podgrzybka brunatnego.
[30] [32]W rewizji filogenetycznej analizowano pięć markerów DNA: ITS, nrLSU, tef1α, rpb1 oraz rpb2. Wielogenowa analiza obejmowała regiony 5.8S, nrLSU, tef1α, rpb1 i rpb2, a region ITS badano również osobno. Łącznie dla badanych taksonów uzyskano 55 nowych sekwencji: 13 ITS, 13 nrLSU, 11 tef1α, 10 rpb1 oraz 8 rpb2.
[32]Wielogenowy zbiór danych obejmował 45 taksonów i 4802 pozycje, natomiast oddzielna analiza ITS liczyła 26 sekwencji i 645 pozycji. Wsparcie dla kladu Imleria wyniosło BS = 100% i PP = 1,0. Średnia odległość genetyczna ITS pomiędzy europejskimi a północnoamerykańskimi kolekcjami Imleria badia wyniosła 0,0026 i była wyraźnie niższa od najmniejszego międzygatunkowego dystansu w rodzaju, wynoszącego 0,0176, co uzasadniło utrzymanie populacji z obu kontynentów w ramach jednego gatunku.
[32]Epityp gatunku stanowi szwedzki okaz zebrany przez A. Strida 28 sierpnia 1993 roku w Nordingrå (A. Strid 19707, S-F119691). Z epitypu uzyskano sekwencje referencyjne o numerach dostępu: ITS KJ806970, nrLSU KJ806971, tef1α KJ806969, rpb1 KJ806972 oraz rpb2 KJ806973.
[32]Pomiary mikroskopowe w rewizji taksonomicznej prowadzono na suchych okazach rehydratowanych w 5% KOH, a ocenę barw struktur mikroskopowych wykonywano w wodzie i w KOH. Skórkę kapelusza badano na promienistych przekrojach pionowych w połowie promienia kapelusza, a łuseczki trzonu pobierano z połowy jego wysokości. Obserwacje ultrastruktury zarodników wykonano w mikroskopie skaningowym Hitachi S4800 przy napięciu 10,0 kV.
[32]Ökologie und Verbreitung
Labordiagnostik
Dane ustrukturyzowane
Basidien
Kaulozystiden
- Schnallen
- Schnallen: fehlend. [32]
Hymenialzystiden
- Optisches Erscheinungsbild der Hymenialzystiden
- Optisches Erscheinungsbild der Hymenialzystiden: hyalin. [32]
- Verteilung der hymenialen Zystiden
- Verteilung der hymenialen Zystiden: zerstreut. [32]
- Länge der gemeinsam beschriebenen Hymenialzystiden
- Länge der gemeinsam beschriebenen Hymenialzystiden: 35–65 µm. [32]
- Form der gemeinsam beschriebenen Hymenialzystiden
- Form der gemeinsam beschriebenen Hymenialzystiden: lanzettförmig, fast spindelförmig mit kurzer Spitze oder bauchig. [32]
- Wanddicke der gemeinsam beschriebenen Hymenialzystiden
- Wanddicke der gemeinsam beschriebenen Hymenialzystiden: dünnwandig. [32]
- Breite der gemeinsam beschriebenen Hymenialzystiden
- Breite der gemeinsam beschriebenen Hymenialzystiden: 6–10 µm. [32]
Mykorrhiza
- Verzweigung der Mykorrhiza
- Verzweigung der Mykorrhiza: dichotom oder unverzweigt. [29]
- Länge der Mykorrhiza
- Länge der Mykorrhiza: 2–10 mm. [29]
- Häufigkeit ausstrahlender Mykorrhizahyphen
- Häufigkeit ausstrahlender Mykorrhizahyphen: vereinzelt. [29]
- Muster des Hartigschen Netzes
- Muster des Hartigschen Netzes: Palmetti-Typ. [29]
- Aussehen des Mykorrhizamantels
- Aussehen des Mykorrhizamantels: silbrig. [29]
- Struktur des Mykorrhizamantels
- Struktur des Mykorrhizamantels: plektenchymatisch. [29]
- Oberflächenrelief des Mykorrhizamantels
- Oberflächenrelief des Mykorrhizamantels: glatt. [29]
- Farbe der Mykorrhizarhizomorphen
- Farbe der Mykorrhizarhizomorphen: weißlich. [29]
- Vorhandensein von Mykorrhizarhizomorphen
- Vorhandensein von Mykorrhizarhizomorphen: vorhanden. [29]
Huthaut
- Farbe der Huthauthyphen
- Farbe der Huthauthyphen: gelblich. [32]
- Inkrustierung der Huthauthyphen
- Inkrustierung der Huthauthyphen: vorhanden. [32]
- Einbettung der Huthauthyphen in eine gallertige Substanz
- Einbettung der Huthauthyphen in eine gallertige Substanz: vorhanden. [32]
- Farbe des Huthautpigments
- Farbe des Huthautpigments: gelbbraun. [32]
- Aufbau der Huthaut
- bei jungen Fruchtkörpern: Aufbau der Huthaut: Ixotrichoderm. [32]
bei reifen Fruchtkörpern: Aufbau der Huthaut: verflochtenes Ixotrichoderm. [32] - Spitzenform der Endzelle der Huthaut
- Spitzenform der Endzelle der Huthaut: abgerundet. [32]
Spitzenform der Endzelle der Huthaut: sich verjüngend. [32] - Länge der Endzelle der Huthaut
- Länge der Endzelle der Huthaut: 30–60 µm. [32]
- Form der Endzelle der Huthaut
- Form der Endzelle der Huthaut: zylindrisch. [32]
- Breite der Endzelle der Huthaut
- Breite der Endzelle der Huthaut: 4–7 µm. [32]
Reaktionen mit Reagenzien
DNA-Sequenzen
- Sequenz
- Imleria badia; ITS; KJ806970; S-F119691(epitype)
- Sequenz
- Imleria badia; nrLSU; KJ806971; S-F119691(epitype)
- Sequenz
- Imleria badia; tef1alpha; KJ806969; S-F119691(epitype)
- Sequenz
- Imleria badia; rpb1; KJ806972; S-F119691(epitype)
- Sequenz
- Imleria badia; rpb2; KJ806973; S-F119691(epitype)
- Sequenz
- Imleria badia; rDNA58S; KC215204; HKAS53502
- Sequenz
- Imleria badia; nrLSU; KC215213; HKAS53502
- Sequenz
- Imleria badia; tef1alpha; KC215247; HKAS53502
- Sequenz
- Imleria badia; rpb1; KC215226; HKAS53502
- Sequenz
- Imleria badia; rpb2; KC215235; HKAS53502
- Sequenz
- Imleria badia; nrLSU; KC215212; HKAS74714
- Sequenz
- Imleria badia; tef1alpha; KC215242; HKAS74714
- Sequenz
- Imleria badia; rpb1; KC215224; HKAS74714
Sporen
- Sporenfarbe unter dem Mikroskop
- Sporenfarbe unter dem Mikroskop: fast hyalin. [32]
- Tropfen im Inneren der Spore
- Tropfen im Inneren der Spore: 1–2. [32]
- Verhältnis von Sporenlänge zu Sporenbreite
- Verhältnis von Sporenlänge zu Sporenbreite: 2,3–4,2. [32]
- Sporenform
- Sporenform: fast spindelförmig. [32]
Sporenform: ellipsoid. [32]
Sporenform: langgestreckt ellipsoid. [32] - Sporenoberfläche
- Sporenoberfläche: glatt. [32]
- Sporenwanddicke
- Sporenwanddicke: 0,5 µm. [32]
Hymenophoraltrama
Untersuchungsmaterial und -methoden
Wichtigste Inhaltsstoffe und ihre Wirkung
Próbki marynat odsączono, zamrożono, poddano liofilizacji i rozdrobnieniu, a bezpośrednio przed pomiarem suszono sublimacyjnie przez trzy dni. Aktywność gamma mierzono spektrometrem z detektorem germanowym HPGe o wydajności względnej 18% i rozdzielczości 1,9 keV przy energii 1,332 MeV. Wyniki przeliczono na moment pobrania próbek, a zawartość potasu obliczono na podstawie aktywności ⁴⁰K.
[22]- In den Quellen dokumentierte Ergebnisse — Sporenlänge
- Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 12–16 µm; zakres pomiaru: korpus [13]
Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć długość od 11 do 17,5 mikrometra. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 11–18 µm; zakres pomiaru: korpus [24] - In den Quellen dokumentierte Ergebnisse — Sporenbreite
- Materiał badania: Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera. Materiał suszony, ponownie nawodniony (przygotowanie opisano w Metodach): Zarodnik może mieć szerokość od 3,5 do 5 mikrometrów. [32]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4,5–6 µm; zakres pomiaru: korpus [24]
Materiał badania: Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane. 4–5,5 µm; zakres pomiaru: korpus [13]
Metody i zapisy źródłowe — Materiał europejski Imleria badia z opracowania Zhu i in. 2014; wynik opisowy na poziomie badanego zakresu, bez przypisania do pojedynczego vouchera.
Stan materiału: ponownie nawodniony.
Pochodzenie materiału: Badane europejskie kolekcje rewizji SE/DE/IT; nie wynik z Polski..
Identyfikacja kropli: nierozstrzygnięta.
Metoda źródłowa. Technika: mikroskopia świetlna (LM). Medium: KOH. Stężenie: 5%. Opis metody w źródle: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników.
Liczba zarodników na jednej podstawce; Długość podstawki; Szerokość podstawki — zapis źródłowy: „Basidia 25–48 × 8–14 μm, clavate, 4-spored.” [32]
Kształt podstawki — zapis źródłowy: „clavate” [32]
Układ kaulocystyd — zapis źródłowy: „caespitose” [32]
Długość kaulocystyd; Szerokość kaulocystyd — zapis źródłowy: „Caulocystidia 29–65 × 5–9 μm” [32]
Kształt kaulocystyd — zapis źródłowy: „clavate, ventricose” [32]
Wygląd optyczny cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia ... hyaline when young” [32]
Rozmieszczenie cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered” [32]
Długość wspólnie opisanych cystyd hymenialnych; Szerokość wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „Pleuro- and cheilocystidia scattered, 35–65 × 6–10 μm” [32]
Kształt wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „lanceolate to subfusoid-mucronate or ventricose” [32]
Grubość ściany wspólnie opisanych cystyd hymenialnych — zapis źródłowy: „thin-walled” [32]
Barwa strzępek skórki kapelusza — zapis źródłowy: „yellowish interwoven hyphae” [32]
Inkrustacja strzępek skórki — zapis źródłowy: „slightly incrusted by yellow-brown (4B8) pigment” [32]
Osadzenie strzępek skórki w substancji żelowej — zapis źródłowy: „embedded in gelatinous substance” [32]
Barwa pigmentu skórki — zapis źródłowy: „yellow-brown (4B8) pigments” [32]
Organizacja skórki kapelusza — zapis źródłowy: „ixotrichoderm in youth” [32]
Organizacja skórki kapelusza — zapis źródłowy: „becoming an ixo-intricate-trichoderm when mature” [32]
Kształt wierzchołka komórki końcowej skórki kapelusza; Długość komórki końcowej skórki kapelusza; Kształt komórki końcowej skórki kapelusza; Szerokość komórki końcowej skórki kapelusza — zapis źródłowy: „terminal cells cylindrical with rounded to tapering apex, 30–60 × 4–7μm.” [32]
Barwa zarodnika w mikroskopie — zapis źródłowy: „nearly hyaline to pale olivaceous brown (2B6) in 5% KOH” [32]
Krople wewnątrz zarodnika — zapis źródłowy: „Jedna lub dwie krople w dojrzałych zarodnikach.” [32]
Długość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; długość 11–15(17,5) µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Iloraz długości i szerokości zarodnika — zapis źródłowy: „Q = (2,3)2,5–3,6(4,2); Qm = 3,0 ± 0,33 (średnia ± odchylenie standardowe); 160 zarodników / 8 owocników / 5 kolekcji.” [32]
Kształt zarodnika — zapis źródłowy: „Boletoidalne: z boku niemal wrzecionowate, od czoła elipsoidalne do podłużnych.” [32]
Powierzchnia zarodnika — zapis źródłowy: „Gładkie pod mikroskopem świetlnym i skaningowym.” [32]
Grubość ściany zarodnika — zapis źródłowy: „Ściana nieco pogrubiała, około 0,5 µm.” [32]
Szerokość zarodnika — zapis źródłowy: „11–15(17,5) × (3,5)4–5 µm; szerokość (3,5)4–5 µm; n = 160 / 8 owocników / 5 kolekcji, ≥90% bez nawiasów, rehydratacja 5% KOH.” [32]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji.
Typ tramy hymenoforu — zapis źródłowy: „Gatunkowa uwaga na s. 33: Boletus badius ma prawdziwie boletoidalną tramę hymenoforu; terminologia na s. 3–4 zalicza ten podtyp do tramy bilateralnej.” [27]
Metody i zapisy źródłowe — Źródłowy opis gatunku Boletus badius, nie diagnoza całego rodzaju ani własny pomiar kolekcji. Lista badanego materiału gatunku na s. 34: JŠ 373, 395, 1814, 1856, 1858, 1875, 1931–32, 1980–81, 2102–03, 3089, 3116, 3120, 3223–25, 4299. Zachowana jako kontekst publikacji, bez wyboru vouchera ani wyliczania N.
Typ tramy hymenoforu — zapis źródłowy: „Na s. 31 B. badius jest wymieniony wprost wśród taksonów z prawdziwie boletoidalną tramą. Wcześniejsza wspólna fraza o B. badius i B. moravicus dopuszcza wygląd boletoidalny lub prawie boletoidalny.” [28]
Metody i zapisy źródłowe — Controlled Imleria badia–Pinus sylvestris mycorrhizal experiment, Bute, Scotland
Pochodzenie materiału: Isle of Bute, Scotland, GB.
Rozgałęzienie mikoryzy — zapis źródłowy: „dichotomous ramification pattern or ramification was absent” [29]
Długość mikoryzy — zapis źródłowy: „2 mm to 10 mm” [29]
Obfitość strzępek wychodzących mikoryzy — zapis źródłowy: „infrequent emanating hyphae” [29]
Wzór sieci Hartiga mikoryzy — zapis źródłowy: „Palmetti-type pattern” [29]
Wygląd płaszczyka mikoryzy — zapis źródłowy: „The mantle was either silvery or smooth” [29]
Organizacja płaszczyka mikoryzy — zapis źródłowy: „plectenchymatous organisation” [29]
Relief powierzchni płaszczyka mikoryzy — zapis źródłowy: „either silvery or smooth” [29]
Barwa ryzomorf mikoryzy — zapis źródłowy: „whitish rhizomorphs” [29]
Obecność ryzomorf mikoryzy — zapis źródłowy: „Rhizomorphs were present” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „younger unramified ends whitish” [29]
Barwa nierozgałęzionych zakończeń mikoryzy — zapis źródłowy: „older unramified ends ochre, yellowish-brown or whitish” [29]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; długość 11–18 µm, n i protokół niepodane.” [24]
Szerokość zarodnika — zapis źródłowy: „11–18 × 4,5–6 µm; szerokość 4,5–6 µm, n i protokół niepodane.” [24]
Metody i zapisy źródłowe — Wynik atlasowy wymiarów zarodników Imleria badia; badany materiał i konkretna kolekcja nie są podane.
Długość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; długość 12–16 µm, n i protokół niepodane.” [13]
Szerokość zarodnika — zapis źródłowy: „12–16 × 4–5,5 µm; szerokość 4–5,5 µm, n i protokół niepodane.” [13]
Überprüfung des Vorkommens — Umfang und Grenzen
Materiał: Pierwotne kolekcje autora atlasu z Dolnego Śląska.
Zakres odczytu: Fragmenty źródeł.
Odczytano fragment źródła; pełny tekst i metody nie zostały zweryfikowane.
Data przeglądu: 21.10.2026.
Ograniczenia: Źródłowe oznaczenie i zakres pojęcia zachowano. Nie zadeklarowano nowego badania okazów ani odczytu wszystkich publikacji cytowanych przez źródło.
[24]- Probenvorbereitung für die Mikroskopie
- Materiał suszony, ponownie nawodniony. Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Materiał ponownie nawodniony. [32]
Protokół dla opisanych obserwacji: Mikroskopia świetlna wysuszonego materiału po rehydratacji w 5% KOH; barwy mikrostruktur badano w wodzie, z zachowaniem jawnego medium KOH przy opisie zarodników. Nie podano kalibracji ani powiększenia. SEM jest osobną opisaną metodą powierzchni bazydiospor, nie metodą wszystkich wyników. [32]
Bearbeitungsumfang
Vor dem Abschluss muss der Datensatz ergänzt oder abgerechnet werden.
- Suche nach Vorkommensregionen erfordert Abrechnung.
- Verknüpfungen früherer Feststellungen erfordern eine erneute Überprüfung.
- Neue Quellen erfordern die Abrechnung von Informationen, die bei der Durchsicht festgestellt wurden.
Rechtsgrundlage und Bewertungsumfang
Vorschriften für Standort: Polen
Wichtigste Inhaltsstoffe und ihre Wirkung
W badaniach biochemicznych Gąseckiej i współpracowników (2017) oceniano profil metali, kwasów fenolowych oraz flawonoidów w owocnikach Imleria badia ze stanowisk o różnym stopniu zanieczyszczenia antropogenicznego. Z kolei Sotek i współpracownicy (2025) badali związki bioaktywne, zdolności antyoksydacyjne oraz zawartość pierwiastków śladowych w trzech gatunkach grzybów, w tym u podgrzybka brunatnego.
[18] [26]Analytische Ergebnisse
Imleria badia; abgetropfte eingelegte Pilze aus dem Handel; Gdańsk; 2016; Trockenmasse
Imleria badia; abgetropfte eingelegte Pilze aus dem Handel; Gdańsk; 2016; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 27000 ± 1100 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 2700 ± 110 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 12000 ± 1800 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 1200 ± 180 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → getrocknet; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 21000 ± 1400 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → getrocknet#; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 2100 ± 140 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 14000 ± 2200 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 2700 ± 1000 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 3200 ± 1800 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 320 ± 180 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 1500 ± 800 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 150 ± 80 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → getrocknet (pulverisiert) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 2500 ± 1400 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → getrocknet (gemahlen) → mazeriert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
- total K
- 250 ± 140 mg/kg; Berechnung der Autoren; bezogen auf die Nassmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → tiefgefroren → blanchiert; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 8800 ± 1200 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Hüte; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; Stiele; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Fruchtkörper; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Nassmasse
Boletus edulis; gepooltes Versuchsmaterial; ganze Pilze; frisch → tiefgefroren → blanchiert → eingelegt; nahe Osiek in der Tucheler Heide, im nördlichen Zentralpolen; 2015; Trockenmasse
- total K
- 3200 ± 850 mg/kg; Berechnung der Autoren; bezogen auf die Trockenmasse.[22]
Boletus edulis; abgetropfte eingelegte Pilze aus dem Handel; gewerblich eingelegt und abgetropft; Gdańsk; 2016; Trockenmasse
Boletus edulis; abgetropfte eingelegte Pilze aus dem Handel; gewerblich eingelegt und abgetropft; Gdańsk; 2016; Nassmasse
Ökologische Untersuchungen
Lebensraum, Gebiet und Jahreszeit
Doświadczenie szklarniowe przeprowadzone na wyspie Bute w Szkocji potwierdziło tworzenie mikoryzy przez Imleria badia na siewkach sosny zwyczajnej (Pinus sylvestris). Nasiona wysiano 20 kwietnia 2024 roku, inokulację przeprowadzono 30 lipca, a ocenę systemu korzeniowego wykonano w listopadzie. Doświadczenie obejmowało 20 siewek w każdym wariancie (do szczegółowej analizy losowano po 10), hodowanych na sterylizowanym podłożu torf–perlit–wermikulit (1:1:1), przy użyciu pojedynczego izolatu oraz trzech metod zakażania: grzybnią, zarodnikami oraz metodą łączoną.
[29]W próbach inokulacji grzybniowej stosowano wycinek agaru o powierzchni 1 cm², natomiast w wariancie zarodnikowym dawkę odpowiadającą około 0,25 g wysuszonego kapelusza na roślinę. Ocenę korzeni prowadzono na trzech poziomach głębokości (0–4 cm, 4–8 cm i 8–12 cm), analizując po trzy losowe fragmenty korzeni z każdej strefy pod mikroskopem stereoskopowym i świetlnym, z barwieniem błękitem bawełnianym w laktofenolu.
[29]Wytworzone ektomikoryzy miały długość 2–10 mm, były nierozgałęzione lub widlasto (dichotomicznie) rozgałęzione. Młode struktury były białawe, starsze ochrowe do żółtobrązowych. Obserwowano białawe ryzomorfy, gładki lub srebrzysty mufkowaty płaszczyk o budowie plektenchymatycznej oraz sieć Hartiga typu Palmetti. W strzępkach i ryzomorfach nie stwierdzono sprzążek. Tożsamość grzyba potwierdzono testem PCR specyficznym dla Imleria badia (produkt o długości 151 par zasad) w 9 niezależnych mikoryzach; korzenie kontrolne dały wynik negatywny.
[29]Średni wskaźnik kolonizacji korzeni wyniósł 7,8% dla grzybni, 4,3% dla zawiesiny zarodników oraz 7,16% dla metody łączonej. Na poszczególnych głębokościach (0–4 cm, 4–8 cm, 8–12 cm) wartości te kształtowały się odpowiednio: 11,7%, 6,3% i 5,4% przy inokulacji grzybnią; 3,3%, 6,4% i 3,2% przy inokulacji zarodnikami; 7,0%, 9,1% i 5,2% przy zastosowaniu obu metod. W grupie kontrolnej nie wykryto mikoryz Imleria badia, a sporadyczna obecność innego grzyba wyniosła średnio 1,11%, 1,33% i 0,89% (łącznie około 1%).
[29]Test Kruskala–Wallisa wykazał statystycznie istotną różnicę pomiędzy grupami inokulowanymi a kontrolą (χ² = 26,77, df = 3, p = 6,57 × 10⁻⁶). Testy Wilcoxona z poprawką Bonferroniego potwierdziły istotną kolonizację względem kontroli dla inokulum grzybniowego (p = 4 × 10⁻⁶), metody łączonej (p = 0,00077) oraz zarodników (p = 0,00031). Pomiędzy samymi metodami inokulacji nie stwierdzono istotnych różnic statystycznych (p > 0,05). Podobnie głębokość podłoża nie wpływała istotnie na poziom kolonizacji (p = 0,3497, 0,3668 i 0,9994).
[29]Czysta kultura jednego z izolatów tworzyła zaczątki owocników (primordia) na pożywkach MMN i PDA po przeniesieniu z inkubatora o temperaturze 23 °C do warunków laboratoryjnych o temperaturze 14–18 °C na okres kilku tygodni. Badania te dotyczą wczesnych etapów formowania mikoryzy i zawiązków, nie stanowiąc metody komercyjnej uprawy owocników.
[29]Analiza biogeograficzna oparta na bazie danych GBIF objęła 69 737 globalnych rekordów występowania Imleria badia i jej synonimów, z których wyselekcjonowano 34 151 rekordów europejskich zgromadzonych w latach 1970–2024 (1970–2025). Dane te reprezentują zgłoszenia obecności gatunku na stanowiskach.
[29]Lebensraum und Vorkommen
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Quellen |
|---|---|---|---|
| Tschechien | Nie ustalono regionów w zapisanych danych | VI–XI |
|
| Polen | Niederschlesien (Gebietsangabe der Quelle) | VI–XI |
|
Materialien
Dokumentation der Untersuchungen
- Mikroskopie
- src-cms-badia[13]
- Geschmacksbeschreibung
- src-coford 2008-badia[14]
- Quantitative Analyse
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7[22]
- Mikroskopie
- src-snowarski-badia[24]
- Mikroskopie
- src-sutara 2005[27]
- Mikroskopie
- src-thomas 2026[29]
- Reagenztests
- Reagenztests
- Reagenztests
- Reagenztests
- Untersuchung der Schnallen
- src-zhu 2014[32]
- Mikroskopie
- src-zhu 2014[32]
- Phylogenetische Untersuchung
- src-zhu 2014[32]
Herbarsammlungen
- S-F119691(epitype)
Schweden; Angermanland,Nordingra; 1993-08-28; A.Strid19707
[32]- HKAS74714
Deutschland; Marburg; 2006-12-04; Z.L.YangM3
[32]- HKAS53502
Deutschland; Marburg; 2006-11-24; L.Wang4
[32]- HKAS74713
Italien; Lazio,CaldaradiManziana/Rome; 2010-11-25; M.GelardiMG396a; 265 m ü. M.
[32]- HKAS75797
Italien; Lombardy,Cevo/Brescia; 2012-08-20; M.GelardiMG463a; 1750 m ü. M.
[32]
Quellen
- Weryfikacja strukturalnych polskich wyników prawnych, 17.10.2026
- src-cms-badia
- src-coford 2008-badia
- ELI: protection
- ELI: trade
- src-gasecka 2017-access
- Saba M., Falandysz J. (2021), Environ. Sci. Pollut. Res. 28:12441–12446; DOI 10.1007/s11356-020-11147-7
- src-sf-badia
- src-snowarski-badia
- src-sotek 2025-access
- src-sutara 2005
- src-sutara 2008
- src-thomas 2026
- src-vizzini 2014
- src-zhu 2014