
Macrolepiota konradii
Macrolepiota konradii
Odmiana gatunku Macrolepiota mastoidea
Їстівний

Установіть місцезнаходження, щоб побачити дані для свого регіону.


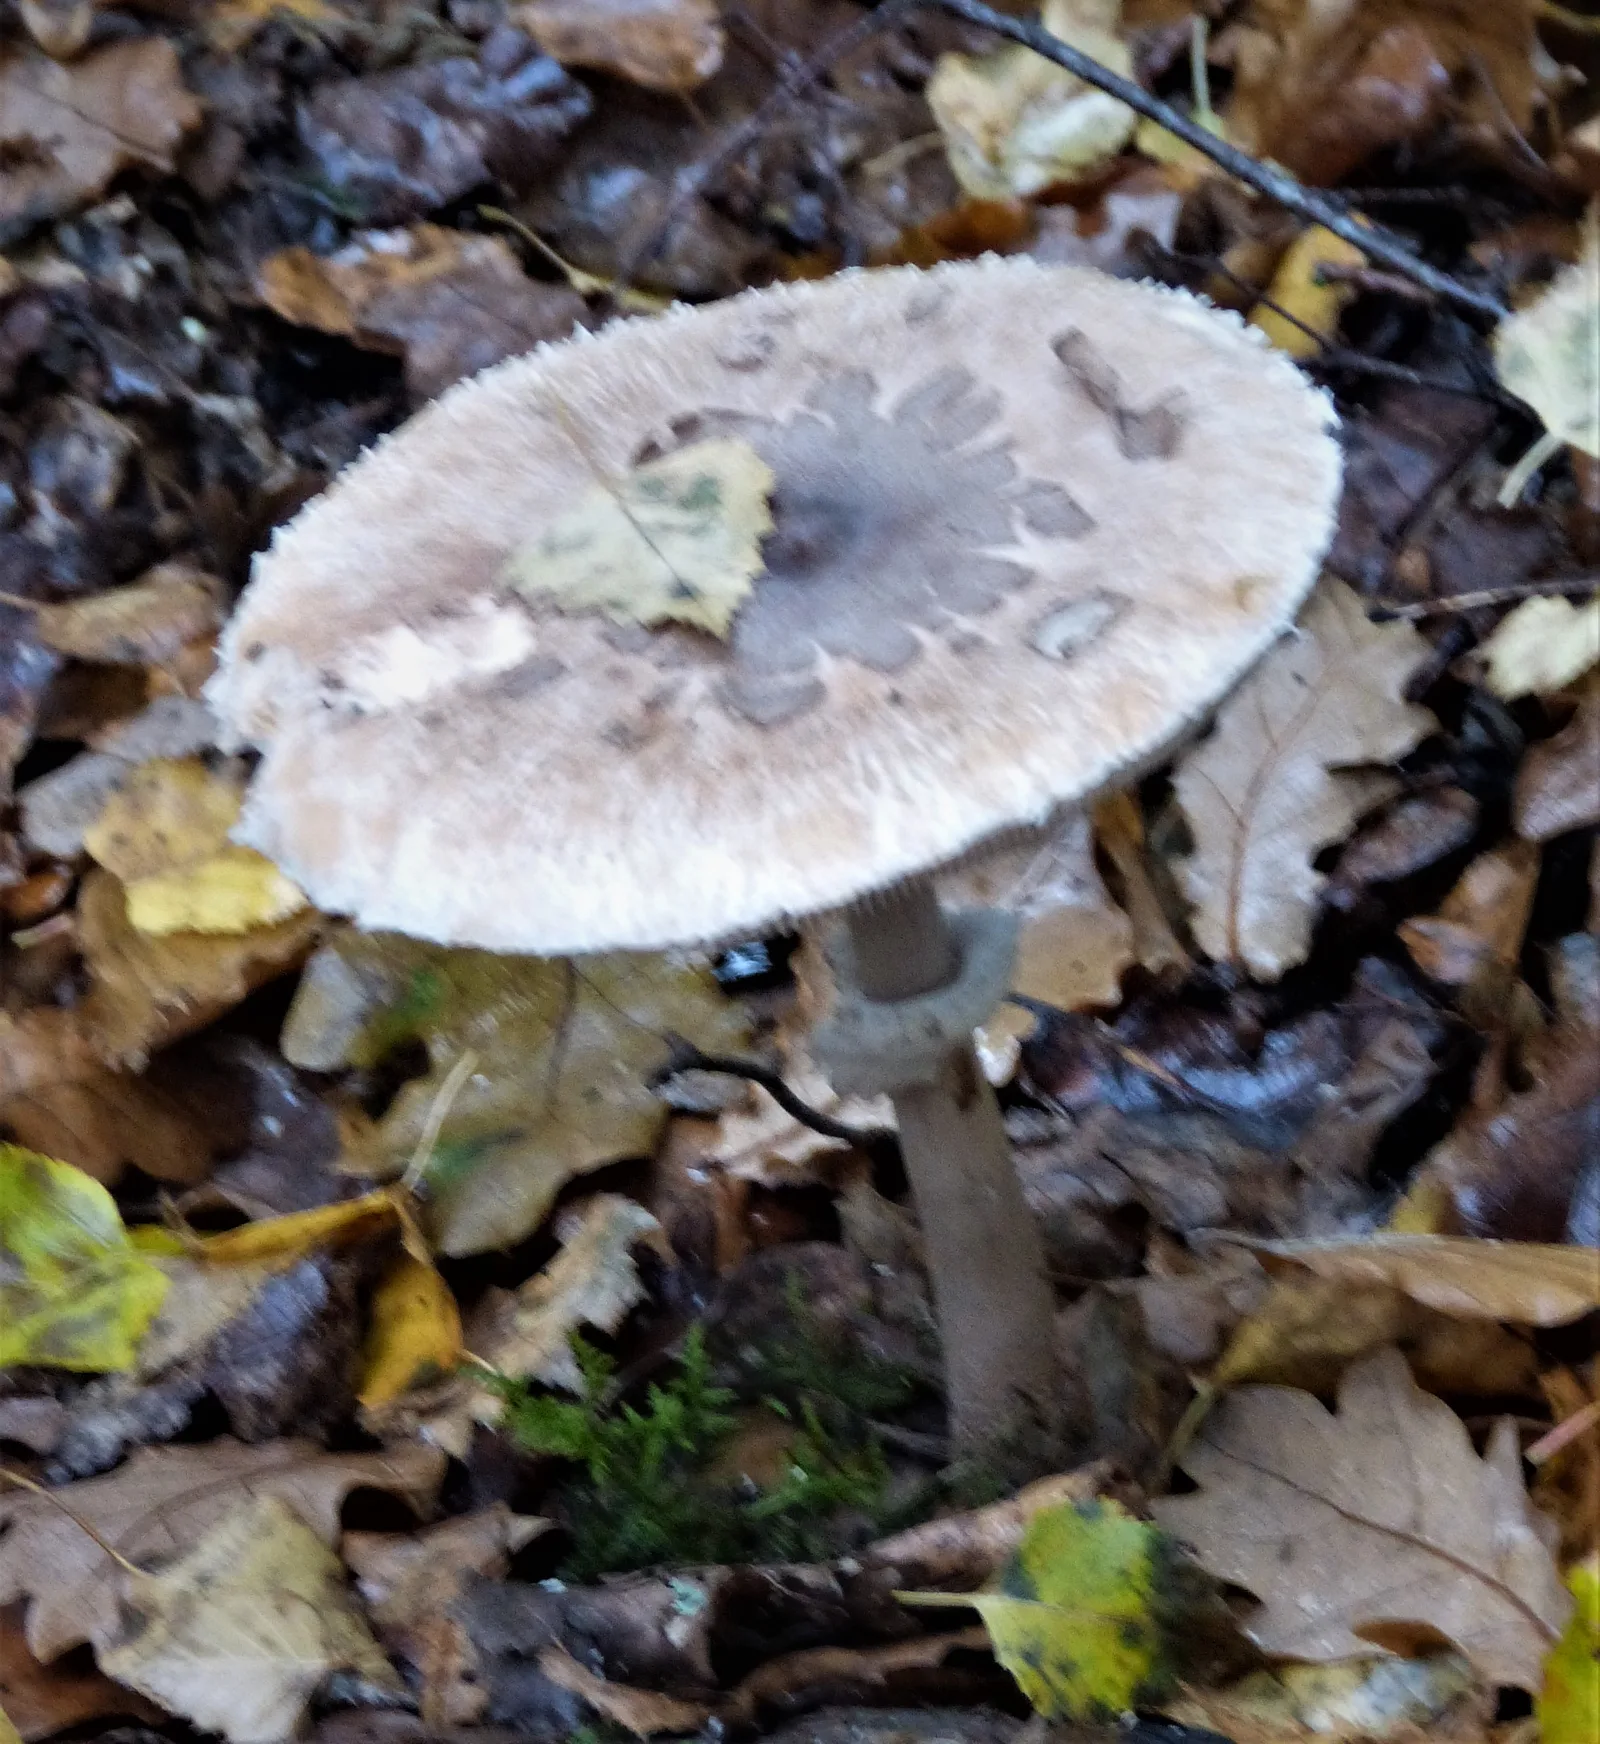
Чубайка зірчаста – ефектний пластинчастий гриб, розпізнавальним знаком якого є шкірка шапинки, що тріскається та утворює навколо темнішого центра характерний зірчастий візерунок. Вона виростає на стрункій ніжці з рухомим кільцем і бульбоподібною основою. Хоча в польових умовах вона привертає увагу контрастним малюнком, для її точного відрізнення від споріднених чубайок необхідно враховувати багато анатомічних ознак, а не лише сам рисунок на шапинці.
Розпізнавання, оселище та найважливіші відмінності.
Грибар
Будова плодового тіла
- Тип будови плодового тіла
- Тип будови плодового тіла: Шапинка.
Тип будови плодового тіла: ніжка.
Шапинка
- Форма шапинки
- Форма шапинки: напівкулястий.
Форма шапинки: опуклий.
у молодих плодових тіл: Форма шапинки: яйцеподібний або дзвоникоподібний.
Форма шапинки: конічний.
Форма шапинки: плоский. - Покрив шапинки
- Покрив шапинки: луската (у вигляді клаптиків, коричнювато-сірий покрив).
Покрив шапинки: луската (гладка поверхня покриву). - Колір шапинки
- Колір шапинки: білувате (основний колір).
Колір шапинки: білий (основний колір).
Колір шапинки: кремовий (основний колір). - Покриття краю
- Покриття краю: голий.
Покриття краю: лускатий. - Залишки покривала на краю
- Залишки покривала на краю: із залишками покривала.
- Діаметр шапинки
- Діаметр шапинки становить 50–120 mm.
- Центр шапинки
- Центр шапинки: з виразним горбком.
Низ шапинки
- Тип гіменофора
- Тип гіменофора: пластинки.
Пластинки біля ніжки
- Прикріплення гіменофора до ніжки
- Прикріплення гіменофора до ніжки: вільний від ніжки (пластинки).
- Колір гіменофора
- Колір гіменофора: білий.
Колір гіменофора: кремовий. - Відстань між пластинками
- Відстань між пластинками: густо розташовані.
Ніжка та основа
- Форма ніжки
- Форма ніжки: циліндричний.
- Основа ніжки
- Основа ніжки: бульбоподібний.
- Колір ніжки
- Колір ніжки: білувате або коричнюватий.
- Покрив поверхні ніжки
- Покрив поверхні ніжки: луската.
Покрив поверхні ніжки: волокниста або луската. - Візерунок поверхні ніжки
- Візерунок поверхні ніжки: зигзагоподібний.
- Довжина ніжки
- Довжина ніжки: 60–150 mm.
- Діаметр ніжки
- Діаметр ніжки: 6–15 mm.
Кільце
- Наявність кільця
- Наявність кільця: наявний (кількість кілець: 1, простої будови).
- Колір кільця
- Колір кільця: коричнюватий (нижня поверхня кільця).
- Покрив поверхні кільця
- Покрив поверхні кільця: пластівчаста (край кільця).
- Рухомість кільця
- Рухомість кільця: рухомий.
Бульба
- Ширина бульби біля основи ніжки
- Ширина бульби біля основи ніжки: до 25 mm.
М'якуш
- Колір м’якуша
- Колір м’якуша: білувате.
- Структура м’якуша
- Структура м’якуша: волокнистий.
Де і коли росте
- Характер росту плодових тіл
- Характер росту плодових тіл: поодинці або групами.
- Період плодоношення
- Плодові тіла з’являються з червня до листопада.
- Територія поширення
- Potwierdzono występowanie w Polsce.
Їстівність і кулінарія
- Їстівність
- Їстівний
Право
- Охорона
- У Польщі вид не підлягає видовій охороні.
- Торгівля
- У Польщі вид не дозволено для торгівлі чи виробництва грибної продукції.
З чим можна сплутати
Macrolepiota procera
Основні відмінності
Гриб-зонтик великий (Macrolepiota procera) зазвичай утворює помітно більші плодові тіла. Його шапинка вкрита відстовбурченими повстяними лусками, а на зрілій ніжці виділяється значно виразніший поперечний зигзагоподібний візерунок.
Macrolepiota excoriata
Основні відмінності
Гриб-зонтик білий (Macrolepiota excoriata) відрізняється від гриба-зонтика зірчастого помітно світлішою шапинкою та гладкою поверхнею ніжки, на якій відсутні дрібні коричнюваті лусочки.
Macrolepiota mastoidea
Основні відмінності
Гриб-зонтик соскоподібний (Macrolepiota mastoidea) утворює дрібніші й густіше розташовані лусочки на шапинці та частіше росте на відкритих трав'янистих ділянках. У міжнародному реєстрі Species Fungorum назва M. konradii визнається синонімом M. mastoidea, тоді як у багатьох регіональних атласах обидва таксони описуються окремо.
Гриб-зонтик зірчастий (Macrolepiota konradii) вирізняється більшими, рідше розташованими лусочками на шапинці, що розтріскуються в характерний зірчастий візерунок, відмінний від дрібного лускування гриба-зонтика соскоподібного. Хоча частина авторів зараховує його до широкого комплексу Macrolepiota mastoidea, у польових умовах він становить окремий таксон.
FAQ
Звідки походить назва чубайки зірчастої?
Вона походить від характерного розтріскування шкірки на шапинці, яка навколо темнішої верхівки розходиться у формі, що нагадує промені зірки.
Чи є чубайка зірчаста їстівним грибом?
В атласах вона вважається їстівною, проте через високий ризик сплутати її зі смертельно отруйними мухоморами або чубаєчками збирати її аматорам не рекомендується.
Чим вона відрізняється від чубайки строкатої?
Вона зазвичай менша й тендітніша, а її шапинка розтріскується на більші луски, що утворюють зірчастий візерунок, на відміну від дрібніших лусочок строкатої чубайки.
Чи свідчить присутність дерев поруч про те, що вона утворює з ними мікоризу?
Ні. Сусідство дерев не свідчить про мікоризу – цей вид є сапротрофом і отримує поживні речовини з підстилки, що розкладається, та гумусу.
У які місяці її можна зустріти в природі?
Плодові тіла з'являються в сезон із літа до осені, зазвичай із липня або серпня до жовтня, залежно від вологості підстилки й температури.
У яких середовищах вона найчастіше виростає?
Вона трапляється в листяних, хвойних і мішаних лісах, на узліссях, лісових галявинах, у чагарниках і парках із деревами.
Чи дає сам лише зірчастий візерунок на шапинці впевненість у визначенні?
Ні. Морфологічна мінливість зонтиків велика, а надійне визначення вимагає оцінки всіх ознак: ніжки, кільця, пластинок та мікроскопії.
Які взаємовідносини між M. konradii та M. mastoidea?
У регіональних підходах вони іноді розглядаються окремо, але в багатьох сучасних таксономічних джерелах M. konradii вважається різновидом або синонімом M. mastoidea.
Які частини плодового тіла придатні для можливого споживання?
Виключно шапинки після ретельної термічної обробки. Ніжки тверді, здерев'янілі й неперетравні, тому їх завжди викидають.
Як виглядає кільце на ніжці гриба-зонтика зірчастого?
Воно виразне, перетинчасте й рухоме — його можна обережно пересувати вгору та вниз по ніжці, не відриваючи від плодового тіла.
Любитель
Назви та історія
- Obowiązująca nazwa krajowa
- Czubajka gwiaździsta
- Obowiązująca nazwa taksonomiczna
- Macrolepiota konradii
Спостереження вдома
Споровий відбиток
- Необхідні матеріали
- свіжа, зріла шапинка, аркуш паперу, склянка або чашка, вода
- Час
- 2–24 h
- Виконання
- Покладіть шапинку нижньою стороною на папір.
- Додайте краплю води зверху та накрийте.
- Через 2–24 годин підніміть шапинку й огляньте осад.
Що шукати
- Колір спорового відбитка
- Колір спорового відбитка: білий.
Під мікроскопом
- Необхідні матеріали
- світловий мікроскоп, предметне й покривне скельця, голка, вода, спори зі спорового відбитка
- Виконання
- Перенесіть голкою трохи спорового відбитка на скельце.
- Додайте краплю води, накрийте покривним скельцем і розгляньте спори.
Що шукати
- Форма спори
- Форма спори: еліпсоїдний. Форма спори: яйцеподібний.
- Розміри спори
- Довжина 11,5–17,2 µm, ширина 8–10,9 µm.
- Розміри спори
- Довжина 14,4 µm, ширина 9,6 µm.
- Розміри спори
- Довжина 14,3 µm, ширина 9,6 µm.
Розміри порівнюйте після калібрування шкали мікроскопа.
Некулінарне застосування
У кулінарному плані використовують виключно шапинки, оскільки ніжки надто тверді, ликуваті та волокнисті. Після ретельного очищення їх найчастіше готують у паніровці або смажать на вершковому маслі, подібно до інших більших чубайок. Цей гриб не має задокументованого лікувального чи промислового застосування, а його значення обмежується епізодичним аматорським збиранням та естетичною роллю в природничій фотографії.
Історія та культура
Вид отримав назву на честь швейцарського міколога Пауля Конрада. В європейській літературі його систематичне положення здавна викликає дискусії – у регіональних атласах його іноді виділяють як окремий таксон, тоді як частина сучасних реєстрів та авторів вважає його формою або синонімом гриба-зонтика соскоподібного (Macrolepiota mastoidea). Через ці номенклатурні складнощі цей гриб не набув глибших, самостійних народних традицій.
Їстівність і безпека
У літературі вона іноді розглядається як їстівний гриб, що цінується подібно до гриба-зонтика великого (чубайки строкатої), проте її збирання пов'язане зі значним ризиком. Наявність пластинок, кільця та бульбоподібної основи ніжки – це ознаки, спільні зі смертельно отруйними мухоморами, а менші плодові тіла легко сплутати з небезпечними чубаєчками. Недостатньо просмажені шапинки можуть викликати шлункові розлади, тому людям без спеціальних знань слід відмовитися від її збирання для харчових цілей.
Оселище та зростання
Плодові тіла трапляються з літа до осені в листяних, хвойних і мішаних лісах, а також на галявинах, у чагарниках і парках. Хоча гриб виростає по сусідству з різними деревами, присутність бука, дуба чи сосни не означає мікоризного зв'язку – цей гриб є сапротрофом, що розкладає органічну речовину в ґрунті та підстилці. З'являється зазвичай поодинці або невеликими групами, віддаючи перевагу місцям із розрідженим рослинним покривом і гумусним ґрунтом.
Дослідник
Їстівність і кулінарія
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Їстівність
- Їстівний
Źródło oznaczenia.
Marek Snowarski, atlas i GRej: Macrolepiota konradii / czubajka gwiaździsta · jadalne czy trujące?: Jadalna [105]. Nie jest to ocena surowych owocników ani wymóg gotowania.
Dosłowna ocena atlasowa jadalności — grzyby.pl i ČMS · Myko.cz / Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká, jen trochu méně vydatná. Wtórny dosłowny odczyt.
Наукові назви та таксономія
- Чинна наукова назва
Macrolepiota konradii
Czubajka gwiaździsta jest opisywana pod nazwą naukową Macrolepiota konradii (Huijsman ex P.D.Orton) M.M.Moser. Według Index Fungorum kombinację tę opublikował Moser w 1967 r. na stronie 185 trzeciego wydania Kleine Kryptogamenflora (tom 2b/2). Basionim Lepiota konradii został opublikowany w 1960 r. Przynależność do rodziny pieczarkowatych (Agaricaceae) potwierdzają Index Fungorum, czeski atlas mykologiczny oraz baza NCBI.
Zakres ujęcia tego taksonu różni się w zależności od bazy danych. W rekordzie Index Fungorum 317072 jako aktualna nazwa (Species Fungorum current name) figuruje Macrolepiota mastoidea (Fr.) Singer (1951). Z kolei baza NCBI prowadzi Macrolepiota konradii jako odrębny gatunek (taxid 90954), a polskie i czeskie atlasy traktują go w osobnych opracowaniach. Klasyfikacja NCBI nie stanowi jednak niezależnego autorytetu nomenklatorycznego, a same rozbieżności w bazach nie pozwalają na automatyczne utożsamienie wszystkich dawnych zbiorów, zdjęć i szczepów.
W historii taksonomii grzyb ten funkcjonował pod nazwami Lepiota konradii, Lepiota excoriata var. konradii oraz Macrolepiota procera var. konradii, które baza NCBI traktuje jako relacje homotypowe lub basionim. Dawne ujęcie w randze odmiany nie oznacza jednak, że każdy okaz oznaczony jako konradii mieści się we współczesnym ujęciu Macrolepiota procera. Atlas czeski przytacza również Macrolepiota gracilenta (Krombh.) Wasser; w rewizji de Koka i Vellingi z 1998 r. taksony M. gracilenta i M. rickenii włączono do kompleksu M. mastoidea.
W analizie filogenetycznej Ge, Yanga i Vellingi z 2010 r. sekwencje oznaczone jako Macrolepiota konradii trafiły do kladu /macrosporae obok M. mastoidea, M. excoriata, M. orientiexcoriata, M. phaeodisca, M. psammophila oraz M. subsquarrosa. Cały klad uzyskał maksymalne poparcie statystyczne (100% bootstrap, PP 1,00). Wysokie poparcie tej grupy potwierdza bliskie pokrewieństwo gatunków, lecz samo w sobie nie rozstrzyga o ich odrębności ani o synonimice.
Межі таксона та обмеження визначення
Prawidłowe oznaczenie czubajki gwiaździstej wymaga łącznej oceny cech makroskopowych i mikroskopowych: układu płatów na kapeluszu, faktury trzonu, budowy i ruchomości pierścienia, wykształcenia blaszek, bulwy u nasady oraz parametrów zarodników. Sam „gwiaździsty” wzór pęknięć na kapeluszu nie wystarcza do pewnej identyfikacji taksonu.
- Zakres ujęcia taksonomicznego
Osobny wpis katalogowy 45 dla czubajki gwiaździstej, pod źródłową nazwą Macrolepiota konradii. Równorzędny z wpisem 44 w katalogowej grupie Macrolepiota mastoidea. GBIF ujmuje nazwę jako synonim; Blanco-Dios 2016 publikuje M. mastoidea var. konradii. Zachowano odrębne zakresy źródeł, okazów i szczepów. Historyczne błędne użycie konradii dla rhodosperma nie uzasadnia automatycznego łączenia danych. Członkostwo w grupie nie rozstrzyga formalnej rangi.
[1] [21]
Назви й історія класифікації
Karta České mykologické společnosti: Karta Czeskiego Towarzystwa Mykologicznego przedstawia takson pod nazwą Macrolepiota konradii i podaje jego synonimy.
de Kok i Vellinga (1998): Artykuł podaje, że M. konradii była rzadka w Holandii i opisuje historyczne, błędne użycie nazwy Lepiota excoriata subsp. mastoidea dla tego taksonu; nie wskazuje odrębnego eksykatu.
Ge i in. (2010): W artykule M. konradii występuje w drzewie filogenetycznym jako sekwencje z Holandii; nie należy do sześciu gatunków opisanych z materiału chińskiego.
Index Fungorum 317072: Rekord podaje kombinację M. konradii, basionym Lepiota konradii oraz powiązane pole bieżącej nazwy w Species Fungorum.
Publikacje Łopusiewicza i współautorów (2015–2016): Trzy zachowane rekordy publikacji wskazują M. konradii jako nazwę materiału badawczego. Jest to użycie nazwy w pracach o ekstraktach, nie rewizja taksonomiczna.
NCBI Taxonomy 90954: Rekord NCBI zachowuje nazwę M. konradii i listę synonimów; sam wskazuje, że nie jest autorytetem nomenklatorycznym.
Atlas Marka Snowarskiego: Pełna karta atlasowa używa nazwy Macrolepiota konradii i polskiej nazwy czubajka gwiaździsta.
Blanco-Dios (2016): Artykuł publikuje Macrolepiota mastoidea var. konradii, MycoBank MB818011, z basionym Lepiota konradii Huijsman ex P.D. Orton (1960).
Friebes (2013): Autor odróżnia pierwotne M. konradii sensu Orton od użycia tej nazwy przez Breitenbach i Kränzlin dla M. rhodosperma.
[11] [12] [16] [17] [18] [19] [9] [20] [21] [10] [15]Екологія та поширення
Лабораторна діагностика
Dane ustrukturyzowane
Спори
- Середнє відношення довжини спори до її ширини
- Середнє відношення довжини спори до її ширини: 1,5 (середнє значення). [21] [8]
Середнє відношення довжини спори до її ширини: 1,5 (середнє значення). [21] [8] - Довжина спори
- Довжина спори: 13–17 µm. [5]
Довжина спори: 11,9–17,2 µm. [6]
Довжина спори: 11,5–16,2 µm. [7]
Довжина спори: 14,3 µm (середнє значення). [7]
Довжина спори: 14,4 µm (середнє значення). [6] - Відношення довжини спори до її ширини
- Відношення довжини спори до її ширини: 1,3–1,7. [6]
Відношення довжини спори до її ширини: 1,3–1,7. [7] - Декстриноїдна реакція спор
- Декстриноїдна реакція спор: декстриноїдна. [5]
Матеріал і методи досліджень
Мікроскопічні дані — джерело та обмеження
Materiał: Źródłowa próba mikroskopowa GRej 375033, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]Materiał: Źródłowa próba mikroskopowa GRej 374428, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]- Результати, наведені в джерелах — Довжина спори
- Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 13–17 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,9–17,2 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,3 mikrometra. [7]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,4 mikrometra. [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,5–16,2 µm [7] - Результати, наведені в джерелах — Відношення довжини спори до її ширини
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [7] - Результати, наведені в джерелах — Ширина спори
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,5 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [7]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,9 µm [7]
Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 8–10 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [6]
Metody i zapisy źródłowe — Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „13–17 × 8–10 µm” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „Dekstrynoidalne, czerwonobrązowe w Melzerze.” [5]
Kształt zarodnika — zapis źródłowy: „Eliptyczne lub jajowate.” [5]
Metody i zapisy źródłowe — GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017129.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 374428: 11,9–16,8 –17,2! × 8,3–10,5 µm; średnio 14,4 × 9,6 µm!; Q 1,3–1,7, średnio 1,5!” [6]
Metody i zapisy źródłowe — GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017123.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 375033: 11,5–16,2 × 8,3–10,9 µm; średnio 14,3 × 9,6 µm; Q 1,3–1,7, średnio 1,5” [7]
Порівняння, ознаки й матеріал джерел
Česká mykologická společnost: Karta opisuje cechy M. konradii i możliwe pomyłki. Dwa numery Nálezy wskazują wpisy z kraju środkowoczeskiego; karta nie podaje dla nich numeru zielnikowego.
de Kok i Vellinga (1998): Pełny artykuł wskazuje historyczne błędne użycie nazwy przy omawianiu M. mastoidea; po przeszukaniu wszystkich stron nie przedstawiono odrębnego opisu diagnostycznego ani oznaczonego eksykatu M. konradii.
Ge i in. (2010): Autorzy uwzględniają M. konradii w analizie filogenetycznej, ale opisują morfologicznie sześć innych gatunków z Chin; trzy holenderskie sekwencje mają odrębne pochodzenie od materiału chińskiego opisanego w części metodycznej.
Łopusiewicz (2016), próba nasion: Szczep pochodził z owocnika zebranego we wrześniu 2013 r. w lesie mieszanym koło Kobylanki. Tkankę trzonu przeniesiono na PDA; hodowlę płynną prowadzono trzy tygodnie w 25 °C przy 150 obr./min. W teście kukurydzy i fasoli układano po 10 nasion na krążku bibuły, dodając 5 ml ekstraktu chloroformowo-acetonowego o stężeniu 10, 50 lub 100 mg/ml; kontrola otrzymywała wodę. Długość korzeni oceniano w dniach 3, 4, 5 i 8.
Łopusiewicz i Lisiecki (2015): Zachowany wtórny zapis wskazuje Kobylankę, wrzesień 2013 r. i szczep izolowany z trzonu; numer zielnikowy, potwierdzenie DNA i liczba niezależnych kultur nie zostały podane.
Atlas i wpisy GRej Marka Snowarskiego: Atlas zawiera opis, porównania i 26 wpisów GRej. Wzmianki o roślinach rosnących w pobliżu opisują kontekst miejsca, nie potwierdzają gospodarza mikoryzowego.
Blanco-Dios (2016): Na stronie 27 cechy trzonu i cebulowatej podstawy M. konradii są przedstawione jako wcześniejsze doniesienia cytowanych autorów; nie są nową obserwacją vouchera.
Friebes (2013): Klucz na stronie 21 opisuje pierwotne M. konradii jako takson o ciemnych, grubych łuskach kapelusza i wyraźnym garbku; użycie nazwy dla M. rhodosperma pozostaje oddzielne.
Okaz BGF0017129: Zapis badania łączy GRej 374428 z eksykatem BGF0017129, zbiorem 4 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Okaz BGF0017123: Zapis badania łączy GRej 375033 z eksykatem BGF0017123, zbiorem 18 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Łopusiewicz i Mizielińska (2016), powłoki PLA: Badano szczep czubajki z okolic Kobylanki oraz bakterie E. coli DSMZ 1576, S. aureus DSMZ 346, M. luteus DSMZ 20729 i B. atrophaeus DSMZ 675. Filtrat hodowli ekstrahowano mieszaniną chloroformu, acetonu i octanu etylu 3:2:1. Porównano czystą folię PLA, folię z 10% etylocelulozą oraz powłokę zawierającą ekstrakt. Warstwę 100 µm suszono 20 minut w 45 °C; ocenę wykonano według ASTM E 2180-01 i metodą dyfuzyjno-krążkową.
[11] [12] [16] [18] [19] [21] [10] [15] [6] [7] [9]Перевірка поширення — обсяг та обмеження
Materiał: Dwa wpisy atlasowe 0066-2024-0264 i 0066-2019-0200 ze Středočeskiego kraju, odpowiednio z 10 października 2024 r. i 20 października 2019 r.
Zakres odczytu: Pełny tekst.
Data przeglądu: 27.10.2026.
[11]Обсяг опрацювання
Перед завершенням запис потрібно доповнити або закрити невирішені перевірки.
- Зареєстровані відомості з джерел очікують на рішення.
- Відомості, знайдені під час огляду нових джерел, потребують перевірки й уточнення.
Відомості, що потребують уточнення: 12
Правова основа та межі оцінки
Правила для місцезнаходження: Польща
Найважливіші речовини та їхня дія
Badania biochemiczne dotyczyły wyciągów uzyskanych z płynu pohodowlanego grzybni oznaczonej jako Macrolepiota konradii. Pomiary te charakteryzują mieszaniny metabolitów wydzielanych do podłoża i nie określają całościowego składu chemicznego owocników rosnących w naturze.
W pracy Łopusiewicza i Lisieckiego (2015) grzybnię wyizolowano z tkanki trzonu owocników zebranych w Kobylance we wrześniu 2013 r. Pierwotną izolację prowadzono na agarze glukozowo-ziemniaczanym (PDA) z dodatkiem 50 mg/l chloramfenikolu w temperaturze 25 °C. Po oczyszczeniu kultury przechowywano w 4 °C, a przed zaszczepieniem hodowli płynnej pasażowano na podłoże PDA bez antybiotyku.
Podłoże płynne w badaniu z 2015 r. zawierało w 1 l wody: 20 g glukozy, 10 g peptonu, 10 g ekstraktu drożdżowego, 0,5 g MgSO₄·7H₂O oraz 1 g K₂HPO₄. Do kolb o pojemności 500 ml wlewano 250 ml pożywki i szczepiono fragmentem agaru PDA z grzybnią o wymiarach 1 × 1 cm. Hodowlę prowadzono przez 21 dni w temperaturze 25 °C na wytrząsarce IKA KS 4000 przy 150 obr./min. Kontrolę stanowiła sterylna pożywka bez grzybni.
Płyn pohodowlany sączono przez filtr o porach 0,2 µm. Do 25 ml filtratu dodawano 25 ml mieszaniny chloroformu, acetonu i octanu etylu w stosunku 3:2:1 (v/v), mieszano przez godzinę przy 300 obr./min, po czym rozdzielano warstwy (określone przez autorów jako dolna warstwa octanowo-etylowa i górna chloroformowo-acetonowa). Rozpuszczalniki odparowywano w 60 °C do zaniku zapachu, a suchy ekstrakt rozpuszczano w 1% roztworze DMSO do stężenia 200 mg/ml (mieszanie przez 30 min przy 100 obr./min w temperaturze pokojowej).
W teście dyfuzyjno-studzienkowym z 2015 r. stosowano płytki Petriego 90 mm z 20 ml agaru Mueller–Hinton oraz 200 µl inokulum bakteryjnego o gęstości 5 w skali McFarlanda. Do trzech studzienek o średnicy 8 mm wprowadzano po 150 µl ekstraktu o stężeniu 200 mg/ml. Płytki poddawano 2-godzinnej predyfuzji w 4 °C, po czym inkubowano przez 24 h w 37 °C. Jako kontrolę negatywną stosowano ekstrakt ze sterylnej pożywki, a jako kontrolę dodatnią – chloramfenikol o stężeniu 0,05 mg/ml.
W próbie dyfuzyjnej ekstrakt o stężeniu 200 mg/ml wytworzył następujące strefy zahamowania wzrostu bakterii:
- Escherichia coli (DSMZ 1576): 16 mm,
- Staphylococcus aureus (DSMZ 346): 17 mm,
- Staphylococcus epidermidis (CBIMO): 18 mm,
- Micrococcus luteus (DSMZ 20729): 36 mm,
- Bacillus cereus (CBIMO): 0 mm,
- Bacillus athrophaeus (DSMZ 675 IZT): 0 mm.
W tym samym badaniu przetestowano sześć gatunków grzybów mikroskopowych: Aspergillus clavatus, Aspergillus niger, Botrytis cinerea, Mucor sp., Penicillium chrysogenum oraz Rhizopus sp. Na podłożu Sabourauda z inokulum zarodników (100 µl zawiesiny w soli fizjologicznej z 0,1% Tween 80), po naniesieniu po 150 µl ekstraktu do studzienek i inkubacji przez 48 h w 25 °C (z 2-godzinną predyfuzją w 4 °C), nie stwierdzono żadnych stref zahamowania wzrostu testowanych grzybów.
W teście przeżywalności bakterii w bulionie Mueller–Hinton ekstrakt (200 mg/ml) dozowano w objętościach od 2,5 do 375 µl (odpowiednio 2,5, 25, 50, 125, 175, 250, 300 i 375 µl). Po odparowaniu rozpuszczalnika w 50 °C dodawano 450 µl bulionu oraz 50 µl zawiesiny bakteryjnej o gęstości 0,5 McFarlanda (ok. 1,5 × 10⁸ CFU/ml). Po 24 h inkubacji w 37 °C wykonywano seryjne rozcieńczenia (10⁻¹–10⁻⁹ w 0,9% NaCl) i posiewano po 100 µl w trzech powtórzeniach na płytki 55 mm, inkubując kolejne 24 h w 37 °C. W metodyce wymieniono stężenia 1–150 mg/ml, a w tabeli wyników ujęto dodatkowo stężenie 170 mg/ml.
Liczba jednostek tworzących kolonie (CFU/ml) po inkubacji z ekstraktem w badaniu z 2015 r.:
- 0 mg/ml (kontrola): E. coli 200 000 000 CFU/ml; S. aureus 175 000 000 CFU/ml,
- 1 mg/ml: E. coli 129 000 000 CFU/ml; S. aureus 145 000 000 CFU/ml,
- 10 mg/ml: E. coli 124 000 000 CFU/ml; S. aureus 128 000 000 CFU/ml,
- 20 mg/ml: E. coli 71 000 000 CFU/ml; S. aureus 1 800 000 CFU/ml,
- 50 mg/ml: E. coli 16 600 CFU/ml; S. aureus 240 000 CFU/ml,
- 70 mg/ml: E. coli 13 200 CFU/ml; S. aureus 91 000 CFU/ml,
- 100 mg/ml: E. coli 9 500 CFU/ml; S. aureus 11 500 CFU/ml,
- 120 mg/ml: E. coli 7 100 CFU/ml; S. aureus 9 600 CFU/ml,
- 150 mg/ml: E. coli 6 400 CFU/ml; S. aureus 6 500 CFU/ml,
- 170 mg/ml: E. coli 5 500 CFU/ml; S. aureus 4 000 CFU/ml.
W podsumowaniu badania autorzy określili spadek liczby żywych bakterii jako redukcję o około pięć rzędów wielkości (przy 150 mg/ml dla E. coli i 120 mg/ml dla S. aureus). Dokładne wyliczenie logarytmiczne ze stężeń w tabeli daje spadek o 4,49 rzędu wielkości dla E. coli oraz 4,26 dla S. aureus.
Wydajność suchego ekstraktu pohodowlanego podana przez badaczy wyniosła 25,25 g/l. W doświadczeniu masa krystalizatora wzrosła z 78,26 g do 82,15 g (przyrost o 3,89 g) po odparowaniu 154 ml ekstraktu.
W pracy Łopusiewicza z 2016 r. badano właściwości fitotoksyczne frakcji chloroformowo-acetonowej z hodowli płynnej szczepu z Kobylanki (hodowla 21 dni w 25 °C przy 150 obr./min, pożywka o tożsamym składzie soli, peptonu, glukozy i ekstraktu drożdżowego, ekstrakcja w układzie 3:2:1 i odparowanie w 60 °C). Roztwór podstawowy przygotowano w 1% DMSO w stężeniu 200 mg/ml.
Test fitotoksyczności przeprowadzono na nasionach fasoli zwyczajnej (Phaseolus vulgaris) oraz kukurydzy (Zea mays) firmy Semas. Nasiona odkażano w 50 ml 50% etanolu przez 1 min, trzykrotnie płukano sterylną wodą i wykładano na bibułę w szklanych płytkach Petriego po 10 sztuk. Podawano po 5 ml ekstraktu o stężeniu 10, 50 lub 100 mg/ml, a próba kontrolna otrzymywała 5 ml sterylnej wody destylowanej. Inkubację prowadzono w temperaturze pokojowej, mierząc długość korzeni w 3, 4, 5 i 8 dniu.
W 8. dniu testu zanotowano następujące skrócenie średniej długości korzeni siewek w porównaniu z kontrolą wodną:
- kukurydza przy 10 mg/ml: 55,06%,
- kukurydza przy 50 mg/ml: 63,39%,
- kukurydza przy 100 mg/ml: 91,07%,
- fasola przy 10 mg/ml: 20,00%,
- fasola przy 50 mg/ml: 46,95%,
- fasola przy 100 mg/ml: 94,61%.
Średnia długość korzeni siewek kukurydzy w poszczególnych dniach pomiaru kształtowała się następująco:
- kontrola (0 mg/ml): dzień 3 – 6,5 mm; dzień 4 – 13,1 mm; dzień 5 – 20,6 mm; dzień 8 – 33,6 mm,
- ekstrakt 10 mg/ml: dzień 3 – 2,1 mm; dzień 4 – 4,6 mm; dzień 5 – 10,2 mm; dzień 8 – 15,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 0,4 mm; dzień 4 – 3,4 mm; dzień 5 – 9,3 mm; dzień 8 – 12,3 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 0,0 mm; dzień 5 – 0,3 mm; dzień 8 – 3,0 mm.
Średnia długość korzeni siewek fasoli w poszczególnych dniach pomiaru wynosiła:
- kontrola (0 mg/ml): dzień 3 – 6,25 mm; dzień 4 – 21,0 mm; dzień 5 – 28,5 mm; dzień 8 – 35,25 mm,
- ekstrakt 10 mg/ml: dzień 3 – 6,9 mm; dzień 4 – 15,4 mm; dzień 5 – 21,3 mm; dzień 8 – 28,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 1,3 mm; dzień 4 – 9,0 mm; dzień 5 – 16,4 mm; dzień 8 – 18,7 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 1,5 mm; dzień 5 – 1,7 mm; dzień 8 – 1,9 mm.
Przy najwyższym stężeniu ekstraktu (100 mg/ml) kiełkowanie było wyraźnie opóźnione – pierwsze kiełkujące nasiona fasoli zaobserwowano dopiero w 4. dniu, a kukurydzy w 5. dniu testu. Podana przez autora wartość redukcji wzrostu korzeni kukurydzy dla 10 mg/ml wyniosła 55,06% (wyliczenie z zaokrąglonych wartości bezwzględnych 15,2 mm względem 33,6 mm daje 54,76%).
Łopusiewicz i Mizielińska (2016) zbadali aktywność ekstraktów z Macrolepiota konradii oraz ich powłok na folii PLA. Sam ekstrakt chloroformowo-acetonowy hamował M. luteus, S. aureus i E. coli (nie działał na B. atrophaeus). Jednak w testach powłok etylocelulozowych na PLA (wobec E. coli i S. aureus) dodatek ekstraktu dał znikomy efekt w porównaniu z samą etylocelulozą; autorzy uznali, że ekstrakt nie tworzy aktywnej powłoki przeciwbakteryjnej.
[9]Аналітичні результати
Результати з джерел та їхні обмеження
Drzewo filogenetyczne Ge i in. (2010): Pełne drzewo pokazuje sekwencje AY243603, AY243602 i AY243601 jako M. konradii z Holandii; są nieoznaczone gwiazdką, więc nie zostały wygenerowane w tej pracy.
Zachowane wtórne zestawienie z 2015 r.: W zachowanym wtórnym zestawieniu tabela 1 podaje sześć średnic stref w milimetrach; odchylenia standardowe i liczba powtórzeń nie zostały podane.
Ekstrakt i powłoki PLA — Łopusiewicz i Mizielińska (2016): Przy stężeniu ekstraktu 200 mg/ml tabela 1 podaje strefy zahamowania 16 mm dla E. coli, 17 mm dla S. aureus, 36 mm dla M. luteus i 0 mm dla B. atrophaeus. W porównaniu czystej folii PLA, samej etylocelulozy i powłoki z ekstraktem tabela 3 podaje dla E. coli odpowiednio 787, 11,7 i 6,89 × 10⁶ JTK/ml, a tabela 4 dla S. aureus: 55,4, 3,89 i 1,33 × 10⁵ JTK/ml. Obie tabele zachowują osobne SD. Autorzy opisują nieznacznie większe działanie powłoki z ekstraktem, lecz we wniosku nie uznają uzyskanej powłoki etylocelulozowej za aktywną. Liczby tabel i procenty podane w tekście zachowano jako odrębne wyniki źródła.
Test korzeni kukurydzy i fasoli — Łopusiewicz (2016): W dniu 8 ryciny 2 i 4 podają długość korzeni jako procent kontroli. Dla stężeń 10, 50 i 100 mg/ml są to odpowiednio: kukurydza 44,94%, 36,61% i 8,93%; fasola 80%, 53,05% i 5,39%. To długość pozostała względem kontroli, nie procent redukcji. Dla kukurydzy przy 10 mg/ml rycina 1 podaje jednocześnie 15,2 mm wobec kontroli 33,6 mm, co nie odpowiada dokładnie procentowi z ryciny 2. Obie wartości źródłowe zachowano. Badanie dotyczyło siewek w płytkach, nie skuteczności w terenie.
[16] [19] [9] [18]Екологічні дослідження
Поширення й оселище
Česká mykologická společnost: Atlas ČMS podaje okres od lipca do listopada i występowanie w ściółce lasów liściastych oraz iglastych. Dwa odrębne zgłoszenia z 10 października 2024 r. i 20 października 2019 r. dotyczą kraju środkowoczeskiego; ogólny opis sezonu nie jest ograniczony do tych stanowisk.
Atlas Marka Snowarskiego: Atlas grzybów Polski dokumentuje występowanie w Polsce i podaje okres od lata do jesieni. Zbiory GRej 374428 i 375033 pochodzą z województwa zachodniopomorskiego, odpowiednio z 4 i 18 listopada 2023 r. Datowane znaleziska nie wyznaczają pełnego sezonu.
Historyczna wzmianka o Holandii: de Kok i Vellinga (1998, s. 69) określają Macrolepiota konradii jako rzadką w Holandii. Jest to historyczna wzmianka krajowa; autorzy nie wskazują tu konkretnego stanowiska, daty zbioru ani vouchera.
[11] [21] [12]Оселище та зростання
Оселище, територія й пора року
W Czechach gatunek występuje w rozproszeniu od lipca do listopada. Rośnie w ściółce lasów liściastych oraz iglastych, preferując miejsca jaśniejsze i lepiej doświetlone.
W Niderlandach w rewizji de Koka i Vellingi z 1998 r. zarówno Macrolepiota konradii, jak i M. mastoidea zostały określone jako taksony rzadkie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Джерела |
|---|---|---|---|
| Чехія | Середньочеський край | Nie ustalono |
|
| Польща | Західнопоморське воєводство | VI–XI |
|
Джерела
- GBIF — dokładne dopasowanie Macrolepiota konradii
- Weryfikacja polskich wykazów ochrony i obrotu dla czubajki gwiaździstej
- Atlas ČMS — opis mikroskopowy (także [11])
- GRej 374428 — okaz BGF0017129 (także [7], [21])
- Źródłowa średnia Q — GRej 374428
- Dokumentacja źródłowa badań z 2016 roku: metody i wyniki, czubajka gwiaździsta.
- Blanco-Dios J.B. 2016. Agaricales de las dunas de Galicia (VI): una nueva variedad de Macrolepiota y algunas combinaciones nuevas. Tarrelos 18:27-28.
- de Kok R.P.J., Vellinga E.C. 1998. Notulae ad Floram agaricinam neerlandicam—XXXII.Macrolepiota. Persoonia17(1): 69–79
- Rozporządzenie Ministra Środowiska 9.10.2014; Dz.U. 2014 poz. 1408
- Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U. 2026 poz. 258
- Friebes G. 2013. Der Tintling 83:19-22.
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota(Agaricaceae, Basidiomycota)inChina. FungalDiversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Index Fungorum 317072, Macrolepiota konradii
- Łopusiewicz Ł.2016. Ocena możliwości zastosowania ekstraktu z grzyba Macrolepiota konradii jako naturalnego bioherbicydu
- Łopusiewicz Ł., Lisiecki S. 2015. Analiza właściwości bakteriostatycznych i fungistatycznych grzyba Macrolepiota konradii. Badania i Rozwój Młodych Naukowców wPolsce, Nauki przyrodnicze TomI, CzęśćII, str.79–84
- NCBI Taxonomy90954, Macrolepiota konradii