
Macrolepiota konradii
Macrolepiota konradii
Odmiana gatunku Macrolepiota mastoidea
Valgomas

Nustatykite vietovę, kad matytumėte savo regiono duomenis.


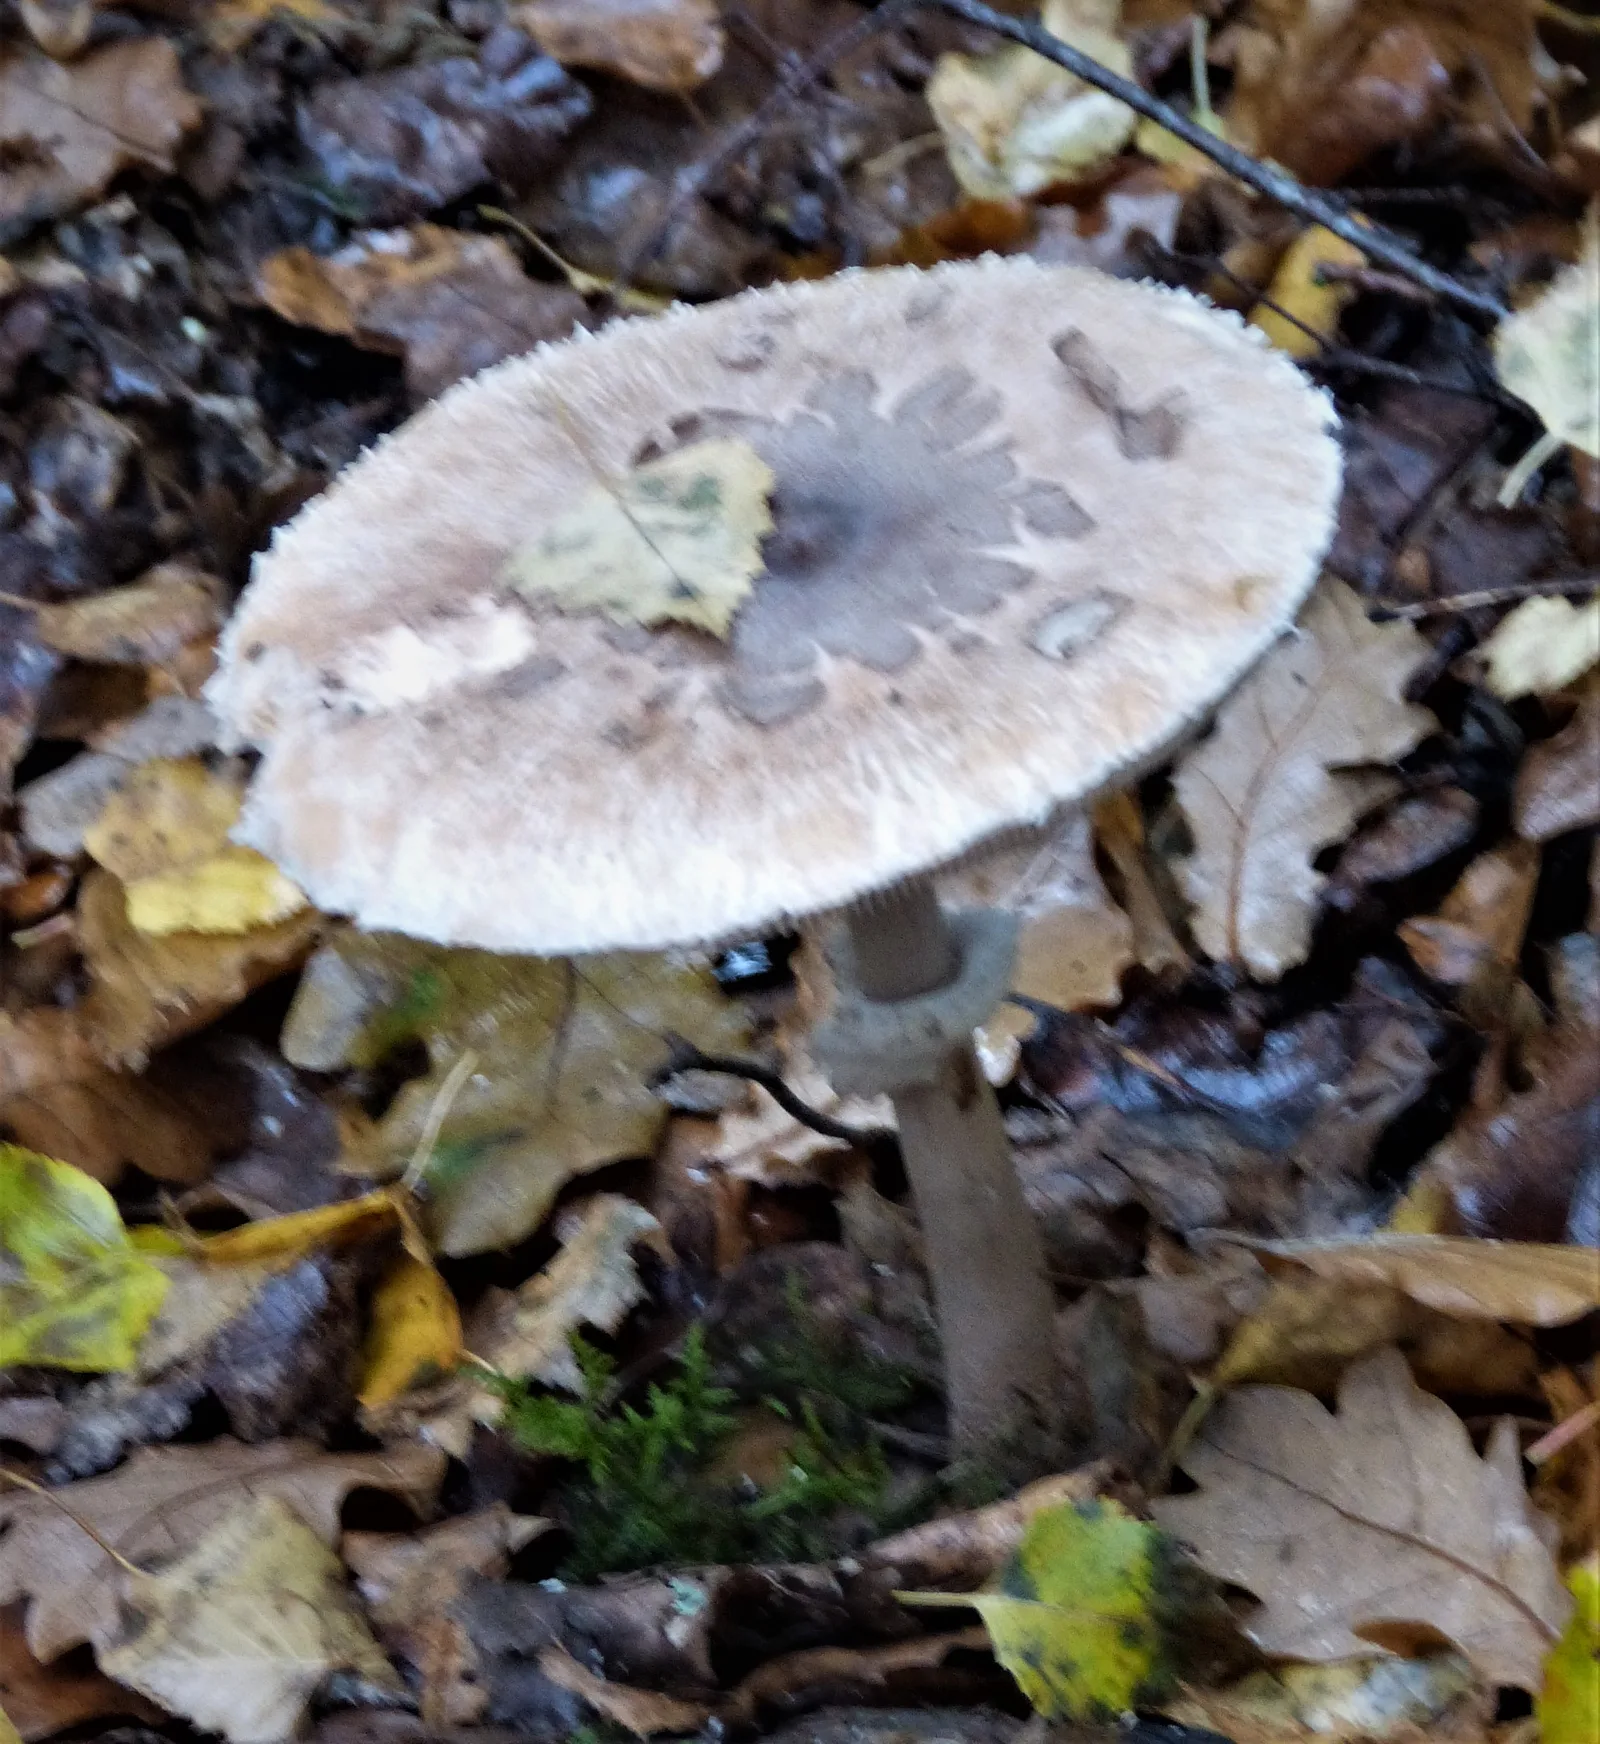
Žvaigždiškoji žvynabudė – tai įspūdingas lakštelinis grybas, kurio atpažįstamasis bruožas yra trūkinėjanti kepurėlės odelė, aplink tamsesnį centrą sudaranti būdingą žvaigždišką raštą. Ji auga ant grakštaus koto su judamu žiedu ir gumbišku pagrindu. Nors gamtoje traukia akį kontrastingais raštais, norint ją tiksliai atskirti nuo giminingų žvynabudžių, reikia atsižvelgti į daugelį anatominių požymių, o ne vien į patį kepurėlės piešinį.
Atpažinimas, buveinė ir svarbiausi skirtumai.
Grybautojas
Vaisiakūnio sandara
- Vaisiakūnio sandaros tipas
- Vaisiakūnio sandaros tipas: Kepurėlė.
Vaisiakūnio sandaros tipas: kotas.
Kepurėlė
- Kepurėlės forma
- Kepurėlės forma: pusiau rutuliška.
Kepurėlės forma: išgaubtas.
jaunų vaisiakūnių: Kepurėlės forma: kiaušiniškas arba varpiškas.
Kepurėlės forma: kūgiškas.
Kepurėlės forma: plokščia. - Kepurėlės danga
- Kepurėlės danga: žvynuota (lopinėliais, rusvai pilka danga).
Kepurėlės danga: žvynuota (lygus dangos paviršius). - Kepurėlės spalva
- Kepurėlės spalva: balsva (fono spalva).
Kepurėlės spalva: baltas (fono spalva).
Kepurėlės spalva: kreminis (fono spalva). - Krašto danga
- Krašto danga: plikas.
Krašto danga: žvynuotas. - Apvalkalo liekanos krašte
- Apvalkalo liekanos krašte: su apdangalo liekanomis.
- Kepurėlės skersmuo
- Kepurėlės skersmuo – 50–120 mm.
- Kepurėlės centras
- Kepurėlės centras: su ryškiu gūbreliu.
Kepurėlės apačia
- Himenoforo tipas
- Himenoforo tipas: lakšteliai.
Lakšteliai prie koto
- Himenoforo prisitvirtinimas prie koto
- Himenoforo prisitvirtinimas prie koto: laisvas nuo koto (lakšteliai).
- Himenoforo spalva
- Himenoforo spalva: baltas.
Himenoforo spalva: kreminis. - Lakštelių išsidėstymo tankis
- Lakštelių išsidėstymo tankis: tankiai išsidėstę.
Kotas ir pamatas
- Koto forma
- Koto forma: cilindriškas.
- Koto pagrindas
- Koto pagrindas: gumbiškas.
- Koto spalva
- Koto spalva: balsva arba rusvas.
- Koto paviršiaus danga
- Koto paviršiaus danga: žvynuota.
Koto paviršiaus danga: plaušuota arba žvynuota. - Koto paviršiaus raštas
- Koto paviršiaus raštas: vingiuotas.
- Koto ilgis
- Koto ilgis: 60–150 mm.
- Koto skersmuo
- Koto skersmuo: 6–15 mm.
Žiedas
- Žiedo buvimas
- Žiedo buvimas: yra (žiedų skaičius: 1, paprastos sandaros).
- Žiedo spalva
- Žiedo spalva: rusvas (apatinė žiedo pusė).
- Žiedo paviršiaus danga
- Žiedo paviršiaus danga: dribsniuota (žiedo kraštas).
- Žiedo judrumas
- Žiedo judrumas: paslankus.
Gumbas
- Gumbo ties koto pagrindu plotis
- Gumbo ties koto pagrindu plotis: iki 25 mm.
Trama
- Minkštimo spalva
- Minkštimo spalva: balsva.
- Minkštimo struktūra
- Minkštimo struktūra: pluoštinis.
Kur ir kada auga
- Vaisiakūnių augimo pobūdis
- Vaisiakūnių augimo pobūdis: pavieniui arba grupėmis.
- Derėjimo laikotarpis
- Vaisiakūniai pasirodo nuo birželio iki lapkričio.
- Paplitimo sritis
- Potwierdzono występowanie w Polsce.
Valgomumas ir virtuvė
- Valgomumas
- Valgomas
Teisė
- Apsauga
- Lenkijoje rūšiai netaikoma rūšinė apsauga.
- Prekyba
- Lenkijoje rūšimi neleidžiama prekiauti ar iš jos gaminti grybų produktų.
Su kuo galima supainioti
Macrolepiota procera
Svarbiausi skirtumai
Didžioji skėtpadėlė (Macrolepiota procera) paprastai išaugina pastebimai didesnius vaisiakūnius. Jos kepurėlė padengta atvipusiais, veltiniškais žvynais, o ant subrendusio koto matomas kur kas ryškesnis, skersinis, zigzago formos raštas.
Macrolepiota excoriata
Svarbiausi skirtumai
Smėlyninė skėtpadėlė (Macrolepiota excoriata) nuo žvaigždėtosios skėtpadėlės skiriasi pastebimai šviesesne kepurėle ir lygiu koto paviršiumi, ant kurio nėra smulkių rusvų žvynelių.
Macrolepiota mastoidea
Svarbiausi skirtumai
Gūbriuotoji skėtpadėlė (Macrolepiota mastoidea) formuoja smulkesnius ir tankiau išsidėsčiusius kepurėlės žvynelius bei dažniau auga atvirose, žolėtose vietose. Tarptautiniame registre „Species Fungorum“ pavadinimas M. konradii laikomas M. mastoidea sinonimu, tuo tarpu daugelyje regioninių atlasų abu taksonai aprašomi atskirai.
Žvaigždėtoji skėtpadėlė (Macrolepiota konradii) pasižymi didesniais, rečiau išsidėsčiusiais kepurėlės žvyneliais, skeldėjančiais būdingu žvaigždišku raštu, kuris skiriasi nuo smulkaus gūbriuotosios skėtpadėlės žvyneliuotumo. Nors dalis autorių ją priskiria plačiajam Macrolepiota mastoidea kompleksui, lauko sąlygomis ji laikoma atskiru taksonu.
FAQ
Iš kur kilo žvaigždiškosios žvynabudės pavadinimas?
Jis kilo iš būdingo kepurėlės odelės trūkinėjimo, kuri aplink tamsesnę viršūnę išsiskleidžia į formą, primenančią žvaigždės spindulius.
Ar žvaigždiškoji žvynabudė yra valgomas grybas?
Atlasuose ji laikoma valgoma, tačiau dėl didelės rizikos supainioti su mirtinai nuodingomis musmirėmis ar žvynabudėlėmis mėgėjams jos rinkti nerekomenduojama.
Kuo ji skiriasi nuo skėtinės žvynabudės?
Paprastai ji yra mažesnė ir trapesnė, o jos kepurėlė sutrūkinėja į didesnius, žvaigždiškai išsidėsčiusius lopus, priešingai nei smulkesni skėtinės žvynabudės žvynai.
Ar šalia esantys medžiai reiškia, kad ji sudaro su jais mikorizę?
Ne. Medžių kaimynystė nerodo mikorizės – ši rūšis yra saprotrofas ir maistines medžiagas ima iš pūvančios miško paklotės bei humuso.
Kokiais mėnesiais ją galima sutikti gamtoje?
Vaisiakūniai pasirodo sezonu nuo vasaros iki rudens, dažniausiai nuo liepos ar rugpjūčio iki spalio, priklausomai nuo paklotės drėgmės ir temperatūros.
Kokiose aplinkose dažniausiai dygsta?
Aptinkama lapuočių, spygliuočių ir mišriuose miškuose, pamiškėse, miško aikštelėse, krūmynuose bei medžiais apsodintuose parkuose.
Ar vien žvaigždiškas raštas ant kepurėlės suteikia tikrumo nustatant rūšį?
Ne. Skėtpadėlių morfologinis kintamumas yra didelis, o patikimam nustatymui reikia įvertinti visus požymius: kotą, žiedą, lakštelius ir mikroskopiją.
Koks ryšys tarp M. konradii ir M. mastoidea?
Regioniniuose šaltiniuose jie kartais traktuojami atskirai, tačiau daugelyje šiuolaikinių taksonominių šaltinių M. konradii laikoma M. mastoidea atmaina arba sinonimu.
Kurios vaisiakūnio dalys tinka galimam vartojimui maistui?
Tik kepurėlės po kruopštaus terminio apdorojimo. Kotai yra kieti, sumedėję ir nevirškinami, todėl visada išmetami.
Kaip atrodo žvaigždėtosios skėtpadėlės koto žiedas?
Jis yra ryškus, plėvelinis ir judamas – jį galima atsargiai stumdyti kotu aukštyn ir žemyn nenuplėšiant nuo vaisiakūnio.
Mėgėjas
Pavadinimai ir istorija
- Obowiązująca nazwa krajowa
- Czubajka gwiaździsta
- Obowiązująca nazwa taksonomiczna
- Macrolepiota konradii
Stebėjimai namuose
Sporų atspaudas
- Reikalingos medžiagos
- šviežia, subrendusi kepurėlė, popieriaus lapas, stiklinė arba dubenėlis, vanduo
- Laikas
- 2–24 h
- Atlikimas
- Padėkite kepurėlę apatine puse ant popieriaus.
- Užlašinkite lašą vandens ant viršaus ir uždenkite.
- Po 2–24 valandų pakelkite kepurėlę ir apžiūrėkite nuosėdas.
Ko ieškoti
- Sporų atspaudo spalva
- Sporų atspaudo spalva: baltas.
Po mikroskopu
- Reikalingos medžiagos
- šviesinis mikroskopas, objektinis ir dengiamasis stikleliai, adata, vanduo, sporos iš atspaudo
- Atlikimas
- Adata perkelkite šiek tiek atspaudo ant stiklelio.
- Užlašinkite lašą vandens, uždenkite dengiamuoju stikleliu ir apžiūrėkite sporas.
Ko ieškoti
- Sporos forma
- Sporos forma: elipsoidiškas. Sporos forma: kiaušiniškas.
- Sporos matmenys
- Ilgis 11,5–17,2 µm, plotis 8–10,9 µm.
- Sporos matmenys
- Ilgis 14,4 µm, plotis 9,6 µm.
- Sporos matmenys
- Ilgis 14,3 µm, plotis 9,6 µm.
Matmenis lyginkite sukalibravę mikroskopo skalę.
Panaudojimas ne kulinarijoje
Kulinarijoje naudojamos tik kepurėlės, nes kotai yra per kieti, ląstelingi ir plaušingi. Kruopščiai nuvalius, jie dažniausiai ruošiami apvoliojus džiūvėsėliuose arba kepami svieste, panašiai kaip kitos didesnės žvynabudės. Šis grybas neturi dokumentuotų gydomųjų ar pramoninių pritaikymų, o jo reikšmė apsiriboja atsitiktiniu mėgėjišku rinkimu bei estetiniu vaidmeniu gamtos fotografijoje.
Istorija ir kultūra
Rūšis pavadinta šveicarų mikologo Paulo Konrado garbei. Europos literatūroje jos sistematinė padėtis jau seniai kelia diskusijų – regioniniuose atlasuose ji kartais išskiriama kaip atskiras taksonas, o dalis šiuolaikinių registrų ir autorių laiko ją gumbuotosios žvynabudės (Macrolepiota mastoidea) forma arba sinonimu. Dėl šių nomenklatūrinių vingrybių šis grybas nesuformavo gilesnių, savarankiškų liaudies tradicijų.
Valgomumas ir saugumas
Literatūroje jis kartais laikomas valgomu grybu, vertinamu panašiai kaip skėtinė žvynabudė, tačiau jo rinkimas susijęs su didele rizika. Lakšteliai, žiedas ir gumbiškas koto pagrindas yra požymiai, būdingi ir mirtinai nuodingoms musmirėms, o mažesnius vaisiakūnius lengva supainioti su pavojingomis žvynabudėlėmis. Nepakankamai iškeptos kepurėlės gali sukelti skrandžio negalavimų, todėl specialių žinių neturintiems asmenims reikėtų atsisakyti jo rinkimo maistui.
Buveinė ir paplitimas
Vaisiakūniai aptinkami nuo vasaros iki rudens lapuočių, spygliuočių ir mišriuose miškuose, taip pat laukymėse, krūmynuose ir parkuose. Nors dygsta šalia įvairių medžių, buko, ąžuolo ar pušies kaimynystė nereiškia mikorizinio ryšio – šis grybas yra saprotrofas, skaidantis organines medžiagas dirvožemyje ir paklotėje. Paprastai pasirodo pavieniui arba nedidelėmis grupėmis, labiau mėgdamas vietas su praretėjusia augalijos danga ir humusingu substratu.
Tyrėjas
Valgomumas ir virtuvė
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Valgomumas
- Valgomas
Źródło oznaczenia.
Marek Snowarski, atlas i GRej: Macrolepiota konradii / czubajka gwiaździsta · jadalne czy trujące?: Jadalna [105]. Nie jest to ocena surowych owocników ani wymóg gotowania.
Dosłowna ocena atlasowa jadalności — grzyby.pl i ČMS · Myko.cz / Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká, jen trochu méně vydatná. Wtórny dosłowny odczyt.
Moksliniai pavadinimai ir taksonomija
- Galiojantis mokslinis pavadinimas
Macrolepiota konradii
Czubajka gwiaździsta jest opisywana pod nazwą naukową Macrolepiota konradii (Huijsman ex P.D.Orton) M.M.Moser. Według Index Fungorum kombinację tę opublikował Moser w 1967 r. na stronie 185 trzeciego wydania Kleine Kryptogamenflora (tom 2b/2). Basionim Lepiota konradii został opublikowany w 1960 r. Przynależność do rodziny pieczarkowatych (Agaricaceae) potwierdzają Index Fungorum, czeski atlas mykologiczny oraz baza NCBI.
Zakres ujęcia tego taksonu różni się w zależności od bazy danych. W rekordzie Index Fungorum 317072 jako aktualna nazwa (Species Fungorum current name) figuruje Macrolepiota mastoidea (Fr.) Singer (1951). Z kolei baza NCBI prowadzi Macrolepiota konradii jako odrębny gatunek (taxid 90954), a polskie i czeskie atlasy traktują go w osobnych opracowaniach. Klasyfikacja NCBI nie stanowi jednak niezależnego autorytetu nomenklatorycznego, a same rozbieżności w bazach nie pozwalają na automatyczne utożsamienie wszystkich dawnych zbiorów, zdjęć i szczepów.
W historii taksonomii grzyb ten funkcjonował pod nazwami Lepiota konradii, Lepiota excoriata var. konradii oraz Macrolepiota procera var. konradii, które baza NCBI traktuje jako relacje homotypowe lub basionim. Dawne ujęcie w randze odmiany nie oznacza jednak, że każdy okaz oznaczony jako konradii mieści się we współczesnym ujęciu Macrolepiota procera. Atlas czeski przytacza również Macrolepiota gracilenta (Krombh.) Wasser; w rewizji de Koka i Vellingi z 1998 r. taksony M. gracilenta i M. rickenii włączono do kompleksu M. mastoidea.
W analizie filogenetycznej Ge, Yanga i Vellingi z 2010 r. sekwencje oznaczone jako Macrolepiota konradii trafiły do kladu /macrosporae obok M. mastoidea, M. excoriata, M. orientiexcoriata, M. phaeodisca, M. psammophila oraz M. subsquarrosa. Cały klad uzyskał maksymalne poparcie statystyczne (100% bootstrap, PP 1,00). Wysokie poparcie tej grupy potwierdza bliskie pokrewieństwo gatunków, lecz samo w sobie nie rozstrzyga o ich odrębności ani o synonimice.
Taksono apimtis ir nustatymo ribos
Prawidłowe oznaczenie czubajki gwiaździstej wymaga łącznej oceny cech makroskopowych i mikroskopowych: układu płatów na kapeluszu, faktury trzonu, budowy i ruchomości pierścienia, wykształcenia blaszek, bulwy u nasady oraz parametrów zarodników. Sam „gwiaździsty” wzór pęknięć na kapeluszu nie wystarcza do pewnej identyfikacji taksonu.
- Zakres ujęcia taksonomicznego
Osobny wpis katalogowy 45 dla czubajki gwiaździstej, pod źródłową nazwą Macrolepiota konradii. Równorzędny z wpisem 44 w katalogowej grupie Macrolepiota mastoidea. GBIF ujmuje nazwę jako synonim; Blanco-Dios 2016 publikuje M. mastoidea var. konradii. Zachowano odrębne zakresy źródeł, okazów i szczepów. Historyczne błędne użycie konradii dla rhodosperma nie uzasadnia automatycznego łączenia danych. Członkostwo w grupie nie rozstrzyga formalnej rangi.
[1] [21]
Pavadinimai ir klasifikacijos istorija
Karta České mykologické společnosti: Karta Czeskiego Towarzystwa Mykologicznego przedstawia takson pod nazwą Macrolepiota konradii i podaje jego synonimy.
de Kok i Vellinga (1998): Artykuł podaje, że M. konradii była rzadka w Holandii i opisuje historyczne, błędne użycie nazwy Lepiota excoriata subsp. mastoidea dla tego taksonu; nie wskazuje odrębnego eksykatu.
Ge i in. (2010): W artykule M. konradii występuje w drzewie filogenetycznym jako sekwencje z Holandii; nie należy do sześciu gatunków opisanych z materiału chińskiego.
Index Fungorum 317072: Rekord podaje kombinację M. konradii, basionym Lepiota konradii oraz powiązane pole bieżącej nazwy w Species Fungorum.
Publikacje Łopusiewicza i współautorów (2015–2016): Trzy zachowane rekordy publikacji wskazują M. konradii jako nazwę materiału badawczego. Jest to użycie nazwy w pracach o ekstraktach, nie rewizja taksonomiczna.
NCBI Taxonomy 90954: Rekord NCBI zachowuje nazwę M. konradii i listę synonimów; sam wskazuje, że nie jest autorytetem nomenklatorycznym.
Atlas Marka Snowarskiego: Pełna karta atlasowa używa nazwy Macrolepiota konradii i polskiej nazwy czubajka gwiaździsta.
Blanco-Dios (2016): Artykuł publikuje Macrolepiota mastoidea var. konradii, MycoBank MB818011, z basionym Lepiota konradii Huijsman ex P.D. Orton (1960).
Friebes (2013): Autor odróżnia pierwotne M. konradii sensu Orton od użycia tej nazwy przez Breitenbach i Kränzlin dla M. rhodosperma.
[11] [12] [16] [17] [18] [19] [9] [20] [21] [10] [15]Ekologija ir paplitimas
Laboratorinė diagnostika
Dane ustrukturyzowane
Sporos
- Vidutinis sporos ilgio ir pločio santykis
- Vidutinis sporos ilgio ir pločio santykis: 1,5 (vidurkis). [21] [8]
Vidutinis sporos ilgio ir pločio santykis: 1,5 (vidurkis). [21] [8] - Sporos ilgis
- Sporos ilgis: 13–17 µm. [5]
Sporos ilgis: 11,9–17,2 µm. [6]
Sporos ilgis: 11,5–16,2 µm. [7]
Sporos ilgis: 14,3 µm (vidurkis). [7]
Sporos ilgis: 14,4 µm (vidurkis). [6] - Sporos ilgio ir pločio santykis
- Sporos ilgio ir pločio santykis: 1,3–1,7. [6]
Sporos ilgio ir pločio santykis: 1,3–1,7. [7] - Sporų dekstrinoidinė reakcija
- Sporų dekstrinoidinė reakcija: dekstrinoidinė. [5]
Tyrimų medžiaga ir metodai
Mikroskopiniai duomenys — šaltinis ir apribojimai
Materiał: Źródłowa próba mikroskopowa GRej 375033, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]Materiał: Źródłowa próba mikroskopowa GRej 374428, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]- Šaltiniuose pateikti rezultatai — Sporos ilgis
- Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 13–17 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,9–17,2 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,3 mikrometra. [7]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,4 mikrometra. [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,5–16,2 µm [7] - Šaltiniuose pateikti rezultatai — Sporos ilgio ir pločio santykis
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [7] - Šaltiniuose pateikti rezultatai — Sporos plotis
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,5 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [7]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,9 µm [7]
Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 8–10 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [6]
Metody i zapisy źródłowe — Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „13–17 × 8–10 µm” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „Dekstrynoidalne, czerwonobrązowe w Melzerze.” [5]
Kształt zarodnika — zapis źródłowy: „Eliptyczne lub jajowate.” [5]
Metody i zapisy źródłowe — GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017129.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 374428: 11,9–16,8 –17,2! × 8,3–10,5 µm; średnio 14,4 × 9,6 µm!; Q 1,3–1,7, średnio 1,5!” [6]
Metody i zapisy źródłowe — GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017123.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 375033: 11,5–16,2 × 8,3–10,9 µm; średnio 14,3 × 9,6 µm; Q 1,3–1,7, średnio 1,5” [7]
Palyginimai, požymiai ir šaltinių medžiaga
Česká mykologická společnost: Karta opisuje cechy M. konradii i możliwe pomyłki. Dwa numery Nálezy wskazują wpisy z kraju środkowoczeskiego; karta nie podaje dla nich numeru zielnikowego.
de Kok i Vellinga (1998): Pełny artykuł wskazuje historyczne błędne użycie nazwy przy omawianiu M. mastoidea; po przeszukaniu wszystkich stron nie przedstawiono odrębnego opisu diagnostycznego ani oznaczonego eksykatu M. konradii.
Ge i in. (2010): Autorzy uwzględniają M. konradii w analizie filogenetycznej, ale opisują morfologicznie sześć innych gatunków z Chin; trzy holenderskie sekwencje mają odrębne pochodzenie od materiału chińskiego opisanego w części metodycznej.
Łopusiewicz (2016), próba nasion: Szczep pochodził z owocnika zebranego we wrześniu 2013 r. w lesie mieszanym koło Kobylanki. Tkankę trzonu przeniesiono na PDA; hodowlę płynną prowadzono trzy tygodnie w 25 °C przy 150 obr./min. W teście kukurydzy i fasoli układano po 10 nasion na krążku bibuły, dodając 5 ml ekstraktu chloroformowo-acetonowego o stężeniu 10, 50 lub 100 mg/ml; kontrola otrzymywała wodę. Długość korzeni oceniano w dniach 3, 4, 5 i 8.
Łopusiewicz i Lisiecki (2015): Zachowany wtórny zapis wskazuje Kobylankę, wrzesień 2013 r. i szczep izolowany z trzonu; numer zielnikowy, potwierdzenie DNA i liczba niezależnych kultur nie zostały podane.
Atlas i wpisy GRej Marka Snowarskiego: Atlas zawiera opis, porównania i 26 wpisów GRej. Wzmianki o roślinach rosnących w pobliżu opisują kontekst miejsca, nie potwierdzają gospodarza mikoryzowego.
Blanco-Dios (2016): Na stronie 27 cechy trzonu i cebulowatej podstawy M. konradii są przedstawione jako wcześniejsze doniesienia cytowanych autorów; nie są nową obserwacją vouchera.
Friebes (2013): Klucz na stronie 21 opisuje pierwotne M. konradii jako takson o ciemnych, grubych łuskach kapelusza i wyraźnym garbku; użycie nazwy dla M. rhodosperma pozostaje oddzielne.
Okaz BGF0017129: Zapis badania łączy GRej 374428 z eksykatem BGF0017129, zbiorem 4 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Okaz BGF0017123: Zapis badania łączy GRej 375033 z eksykatem BGF0017123, zbiorem 18 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Łopusiewicz i Mizielińska (2016), powłoki PLA: Badano szczep czubajki z okolic Kobylanki oraz bakterie E. coli DSMZ 1576, S. aureus DSMZ 346, M. luteus DSMZ 20729 i B. atrophaeus DSMZ 675. Filtrat hodowli ekstrahowano mieszaniną chloroformu, acetonu i octanu etylu 3:2:1. Porównano czystą folię PLA, folię z 10% etylocelulozą oraz powłokę zawierającą ekstrakt. Warstwę 100 µm suszono 20 minut w 45 °C; ocenę wykonano według ASTM E 2180-01 i metodą dyfuzyjno-krążkową.
[11] [12] [16] [18] [19] [21] [10] [15] [6] [7] [9]Paplitimo tikrinimas — apimtis ir ribos
Materiał: Dwa wpisy atlasowe 0066-2024-0264 i 0066-2019-0200 ze Středočeskiego kraju, odpowiednio z 10 października 2024 r. i 20 października 2019 r.
Zakres odczytu: Pełny tekst.
Data przeglądu: 27.10.2026.
[11]Apžvalgos apimtis
Prieš užbaigiant įrašą reikia papildyti arba užbaigti likusias patikras.
- Užregistruota šaltinio informacija laukia sprendimo.
- Peržiūrint naujus šaltinius rastą informaciją dar reikia patikrinti ir išsiaiškinti.
Informacija, kurią dar reikia patikslinti: 12
Teisinis pagrindas ir vertinimo apimtis
Taisyklės vietovei: Lenkija
Svarbiausios medžiagos ir jų poveikis
Badania biochemiczne dotyczyły wyciągów uzyskanych z płynu pohodowlanego grzybni oznaczonej jako Macrolepiota konradii. Pomiary te charakteryzują mieszaniny metabolitów wydzielanych do podłoża i nie określają całościowego składu chemicznego owocników rosnących w naturze.
W pracy Łopusiewicza i Lisieckiego (2015) grzybnię wyizolowano z tkanki trzonu owocników zebranych w Kobylance we wrześniu 2013 r. Pierwotną izolację prowadzono na agarze glukozowo-ziemniaczanym (PDA) z dodatkiem 50 mg/l chloramfenikolu w temperaturze 25 °C. Po oczyszczeniu kultury przechowywano w 4 °C, a przed zaszczepieniem hodowli płynnej pasażowano na podłoże PDA bez antybiotyku.
Podłoże płynne w badaniu z 2015 r. zawierało w 1 l wody: 20 g glukozy, 10 g peptonu, 10 g ekstraktu drożdżowego, 0,5 g MgSO₄·7H₂O oraz 1 g K₂HPO₄. Do kolb o pojemności 500 ml wlewano 250 ml pożywki i szczepiono fragmentem agaru PDA z grzybnią o wymiarach 1 × 1 cm. Hodowlę prowadzono przez 21 dni w temperaturze 25 °C na wytrząsarce IKA KS 4000 przy 150 obr./min. Kontrolę stanowiła sterylna pożywka bez grzybni.
Płyn pohodowlany sączono przez filtr o porach 0,2 µm. Do 25 ml filtratu dodawano 25 ml mieszaniny chloroformu, acetonu i octanu etylu w stosunku 3:2:1 (v/v), mieszano przez godzinę przy 300 obr./min, po czym rozdzielano warstwy (określone przez autorów jako dolna warstwa octanowo-etylowa i górna chloroformowo-acetonowa). Rozpuszczalniki odparowywano w 60 °C do zaniku zapachu, a suchy ekstrakt rozpuszczano w 1% roztworze DMSO do stężenia 200 mg/ml (mieszanie przez 30 min przy 100 obr./min w temperaturze pokojowej).
W teście dyfuzyjno-studzienkowym z 2015 r. stosowano płytki Petriego 90 mm z 20 ml agaru Mueller–Hinton oraz 200 µl inokulum bakteryjnego o gęstości 5 w skali McFarlanda. Do trzech studzienek o średnicy 8 mm wprowadzano po 150 µl ekstraktu o stężeniu 200 mg/ml. Płytki poddawano 2-godzinnej predyfuzji w 4 °C, po czym inkubowano przez 24 h w 37 °C. Jako kontrolę negatywną stosowano ekstrakt ze sterylnej pożywki, a jako kontrolę dodatnią – chloramfenikol o stężeniu 0,05 mg/ml.
W próbie dyfuzyjnej ekstrakt o stężeniu 200 mg/ml wytworzył następujące strefy zahamowania wzrostu bakterii:
- Escherichia coli (DSMZ 1576): 16 mm,
- Staphylococcus aureus (DSMZ 346): 17 mm,
- Staphylococcus epidermidis (CBIMO): 18 mm,
- Micrococcus luteus (DSMZ 20729): 36 mm,
- Bacillus cereus (CBIMO): 0 mm,
- Bacillus athrophaeus (DSMZ 675 IZT): 0 mm.
W tym samym badaniu przetestowano sześć gatunków grzybów mikroskopowych: Aspergillus clavatus, Aspergillus niger, Botrytis cinerea, Mucor sp., Penicillium chrysogenum oraz Rhizopus sp. Na podłożu Sabourauda z inokulum zarodników (100 µl zawiesiny w soli fizjologicznej z 0,1% Tween 80), po naniesieniu po 150 µl ekstraktu do studzienek i inkubacji przez 48 h w 25 °C (z 2-godzinną predyfuzją w 4 °C), nie stwierdzono żadnych stref zahamowania wzrostu testowanych grzybów.
W teście przeżywalności bakterii w bulionie Mueller–Hinton ekstrakt (200 mg/ml) dozowano w objętościach od 2,5 do 375 µl (odpowiednio 2,5, 25, 50, 125, 175, 250, 300 i 375 µl). Po odparowaniu rozpuszczalnika w 50 °C dodawano 450 µl bulionu oraz 50 µl zawiesiny bakteryjnej o gęstości 0,5 McFarlanda (ok. 1,5 × 10⁸ CFU/ml). Po 24 h inkubacji w 37 °C wykonywano seryjne rozcieńczenia (10⁻¹–10⁻⁹ w 0,9% NaCl) i posiewano po 100 µl w trzech powtórzeniach na płytki 55 mm, inkubując kolejne 24 h w 37 °C. W metodyce wymieniono stężenia 1–150 mg/ml, a w tabeli wyników ujęto dodatkowo stężenie 170 mg/ml.
Liczba jednostek tworzących kolonie (CFU/ml) po inkubacji z ekstraktem w badaniu z 2015 r.:
- 0 mg/ml (kontrola): E. coli 200 000 000 CFU/ml; S. aureus 175 000 000 CFU/ml,
- 1 mg/ml: E. coli 129 000 000 CFU/ml; S. aureus 145 000 000 CFU/ml,
- 10 mg/ml: E. coli 124 000 000 CFU/ml; S. aureus 128 000 000 CFU/ml,
- 20 mg/ml: E. coli 71 000 000 CFU/ml; S. aureus 1 800 000 CFU/ml,
- 50 mg/ml: E. coli 16 600 CFU/ml; S. aureus 240 000 CFU/ml,
- 70 mg/ml: E. coli 13 200 CFU/ml; S. aureus 91 000 CFU/ml,
- 100 mg/ml: E. coli 9 500 CFU/ml; S. aureus 11 500 CFU/ml,
- 120 mg/ml: E. coli 7 100 CFU/ml; S. aureus 9 600 CFU/ml,
- 150 mg/ml: E. coli 6 400 CFU/ml; S. aureus 6 500 CFU/ml,
- 170 mg/ml: E. coli 5 500 CFU/ml; S. aureus 4 000 CFU/ml.
W podsumowaniu badania autorzy określili spadek liczby żywych bakterii jako redukcję o około pięć rzędów wielkości (przy 150 mg/ml dla E. coli i 120 mg/ml dla S. aureus). Dokładne wyliczenie logarytmiczne ze stężeń w tabeli daje spadek o 4,49 rzędu wielkości dla E. coli oraz 4,26 dla S. aureus.
Wydajność suchego ekstraktu pohodowlanego podana przez badaczy wyniosła 25,25 g/l. W doświadczeniu masa krystalizatora wzrosła z 78,26 g do 82,15 g (przyrost o 3,89 g) po odparowaniu 154 ml ekstraktu.
W pracy Łopusiewicza z 2016 r. badano właściwości fitotoksyczne frakcji chloroformowo-acetonowej z hodowli płynnej szczepu z Kobylanki (hodowla 21 dni w 25 °C przy 150 obr./min, pożywka o tożsamym składzie soli, peptonu, glukozy i ekstraktu drożdżowego, ekstrakcja w układzie 3:2:1 i odparowanie w 60 °C). Roztwór podstawowy przygotowano w 1% DMSO w stężeniu 200 mg/ml.
Test fitotoksyczności przeprowadzono na nasionach fasoli zwyczajnej (Phaseolus vulgaris) oraz kukurydzy (Zea mays) firmy Semas. Nasiona odkażano w 50 ml 50% etanolu przez 1 min, trzykrotnie płukano sterylną wodą i wykładano na bibułę w szklanych płytkach Petriego po 10 sztuk. Podawano po 5 ml ekstraktu o stężeniu 10, 50 lub 100 mg/ml, a próba kontrolna otrzymywała 5 ml sterylnej wody destylowanej. Inkubację prowadzono w temperaturze pokojowej, mierząc długość korzeni w 3, 4, 5 i 8 dniu.
W 8. dniu testu zanotowano następujące skrócenie średniej długości korzeni siewek w porównaniu z kontrolą wodną:
- kukurydza przy 10 mg/ml: 55,06%,
- kukurydza przy 50 mg/ml: 63,39%,
- kukurydza przy 100 mg/ml: 91,07%,
- fasola przy 10 mg/ml: 20,00%,
- fasola przy 50 mg/ml: 46,95%,
- fasola przy 100 mg/ml: 94,61%.
Średnia długość korzeni siewek kukurydzy w poszczególnych dniach pomiaru kształtowała się następująco:
- kontrola (0 mg/ml): dzień 3 – 6,5 mm; dzień 4 – 13,1 mm; dzień 5 – 20,6 mm; dzień 8 – 33,6 mm,
- ekstrakt 10 mg/ml: dzień 3 – 2,1 mm; dzień 4 – 4,6 mm; dzień 5 – 10,2 mm; dzień 8 – 15,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 0,4 mm; dzień 4 – 3,4 mm; dzień 5 – 9,3 mm; dzień 8 – 12,3 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 0,0 mm; dzień 5 – 0,3 mm; dzień 8 – 3,0 mm.
Średnia długość korzeni siewek fasoli w poszczególnych dniach pomiaru wynosiła:
- kontrola (0 mg/ml): dzień 3 – 6,25 mm; dzień 4 – 21,0 mm; dzień 5 – 28,5 mm; dzień 8 – 35,25 mm,
- ekstrakt 10 mg/ml: dzień 3 – 6,9 mm; dzień 4 – 15,4 mm; dzień 5 – 21,3 mm; dzień 8 – 28,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 1,3 mm; dzień 4 – 9,0 mm; dzień 5 – 16,4 mm; dzień 8 – 18,7 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 1,5 mm; dzień 5 – 1,7 mm; dzień 8 – 1,9 mm.
Przy najwyższym stężeniu ekstraktu (100 mg/ml) kiełkowanie było wyraźnie opóźnione – pierwsze kiełkujące nasiona fasoli zaobserwowano dopiero w 4. dniu, a kukurydzy w 5. dniu testu. Podana przez autora wartość redukcji wzrostu korzeni kukurydzy dla 10 mg/ml wyniosła 55,06% (wyliczenie z zaokrąglonych wartości bezwzględnych 15,2 mm względem 33,6 mm daje 54,76%).
Łopusiewicz i Mizielińska (2016) zbadali aktywność ekstraktów z Macrolepiota konradii oraz ich powłok na folii PLA. Sam ekstrakt chloroformowo-acetonowy hamował M. luteus, S. aureus i E. coli (nie działał na B. atrophaeus). Jednak w testach powłok etylocelulozowych na PLA (wobec E. coli i S. aureus) dodatek ekstraktu dał znikomy efekt w porównaniu z samą etylocelulozą; autorzy uznali, że ekstrakt nie tworzy aktywnej powłoki przeciwbakteryjnej.
[9]Analitiniai rezultatai
Šaltinių rezultatai ir jų ribos
Drzewo filogenetyczne Ge i in. (2010): Pełne drzewo pokazuje sekwencje AY243603, AY243602 i AY243601 jako M. konradii z Holandii; są nieoznaczone gwiazdką, więc nie zostały wygenerowane w tej pracy.
Zachowane wtórne zestawienie z 2015 r.: W zachowanym wtórnym zestawieniu tabela 1 podaje sześć średnic stref w milimetrach; odchylenia standardowe i liczba powtórzeń nie zostały podane.
Ekstrakt i powłoki PLA — Łopusiewicz i Mizielińska (2016): Przy stężeniu ekstraktu 200 mg/ml tabela 1 podaje strefy zahamowania 16 mm dla E. coli, 17 mm dla S. aureus, 36 mm dla M. luteus i 0 mm dla B. atrophaeus. W porównaniu czystej folii PLA, samej etylocelulozy i powłoki z ekstraktem tabela 3 podaje dla E. coli odpowiednio 787, 11,7 i 6,89 × 10⁶ JTK/ml, a tabela 4 dla S. aureus: 55,4, 3,89 i 1,33 × 10⁵ JTK/ml. Obie tabele zachowują osobne SD. Autorzy opisują nieznacznie większe działanie powłoki z ekstraktem, lecz we wniosku nie uznają uzyskanej powłoki etylocelulozowej za aktywną. Liczby tabel i procenty podane w tekście zachowano jako odrębne wyniki źródła.
Test korzeni kukurydzy i fasoli — Łopusiewicz (2016): W dniu 8 ryciny 2 i 4 podają długość korzeni jako procent kontroli. Dla stężeń 10, 50 i 100 mg/ml są to odpowiednio: kukurydza 44,94%, 36,61% i 8,93%; fasola 80%, 53,05% i 5,39%. To długość pozostała względem kontroli, nie procent redukcji. Dla kukurydzy przy 10 mg/ml rycina 1 podaje jednocześnie 15,2 mm wobec kontroli 33,6 mm, co nie odpowiada dokładnie procentowi z ryciny 2. Obie wartości źródłowe zachowano. Badanie dotyczyło siewek w płytkach, nie skuteczności w terenie.
[16] [19] [9] [18]Ekologiniai tyrimai
Paplitimas ir buveinė
Česká mykologická společnost: Atlas ČMS podaje okres od lipca do listopada i występowanie w ściółce lasów liściastych oraz iglastych. Dwa odrębne zgłoszenia z 10 października 2024 r. i 20 października 2019 r. dotyczą kraju środkowoczeskiego; ogólny opis sezonu nie jest ograniczony do tych stanowisk.
Atlas Marka Snowarskiego: Atlas grzybów Polski dokumentuje występowanie w Polsce i podaje okres od lata do jesieni. Zbiory GRej 374428 i 375033 pochodzą z województwa zachodniopomorskiego, odpowiednio z 4 i 18 listopada 2023 r. Datowane znaleziska nie wyznaczają pełnego sezonu.
Historyczna wzmianka o Holandii: de Kok i Vellinga (1998, s. 69) określają Macrolepiota konradii jako rzadką w Holandii. Jest to historyczna wzmianka krajowa; autorzy nie wskazują tu konkretnego stanowiska, daty zbioru ani vouchera.
[11] [21] [12]Buveinė ir paplitimas
Buveinė, teritorija ir sezonas
W Czechach gatunek występuje w rozproszeniu od lipca do listopada. Rośnie w ściółce lasów liściastych oraz iglastych, preferując miejsca jaśniejsze i lepiej doświetlone.
W Niderlandach w rewizji de Koka i Vellingi z 1998 r. zarówno Macrolepiota konradii, jak i M. mastoidea zostały określone jako taksony rzadkie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Šaltiniai |
|---|---|---|---|
| Čekija | Vidurio Čekijos kraštas | Nie ustalono |
|
| Lenkija | Vakarų Pamario vaivadija | VI–XI |
|
Šaltiniai
- GBIF — dokładne dopasowanie Macrolepiota konradii
- Weryfikacja polskich wykazów ochrony i obrotu dla czubajki gwiaździstej
- Atlas ČMS — opis mikroskopowy (także [11])
- GRej 374428 — okaz BGF0017129 (także [7], [21])
- Źródłowa średnia Q — GRej 374428
- Dokumentacja źródłowa badań z 2016 roku: metody i wyniki, czubajka gwiaździsta.
- Blanco-Dios J.B. 2016. Agaricales de las dunas de Galicia (VI): una nueva variedad de Macrolepiota y algunas combinaciones nuevas. Tarrelos 18:27-28.
- de Kok R.P.J., Vellinga E.C. 1998. Notulae ad Floram agaricinam neerlandicam—XXXII.Macrolepiota. Persoonia17(1): 69–79
- Rozporządzenie Ministra Środowiska 9.10.2014; Dz.U. 2014 poz. 1408
- Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U. 2026 poz. 258
- Friebes G. 2013. Der Tintling 83:19-22.
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota(Agaricaceae, Basidiomycota)inChina. FungalDiversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Index Fungorum 317072, Macrolepiota konradii
- Łopusiewicz Ł.2016. Ocena możliwości zastosowania ekstraktu z grzyba Macrolepiota konradii jako naturalnego bioherbicydu
- Łopusiewicz Ł., Lisiecki S. 2015. Analiza właściwości bakteriostatycznych i fungistatycznych grzyba Macrolepiota konradii. Badania i Rozwój Młodych Naukowców wPolsce, Nauki przyrodnicze TomI, CzęśćII, str.79–84
- NCBI Taxonomy90954, Macrolepiota konradii