
Macrolepiota konradii
Macrolepiota konradii
Odmiana gatunku Macrolepiota mastoidea
Edible

Set your location to see data for your region.


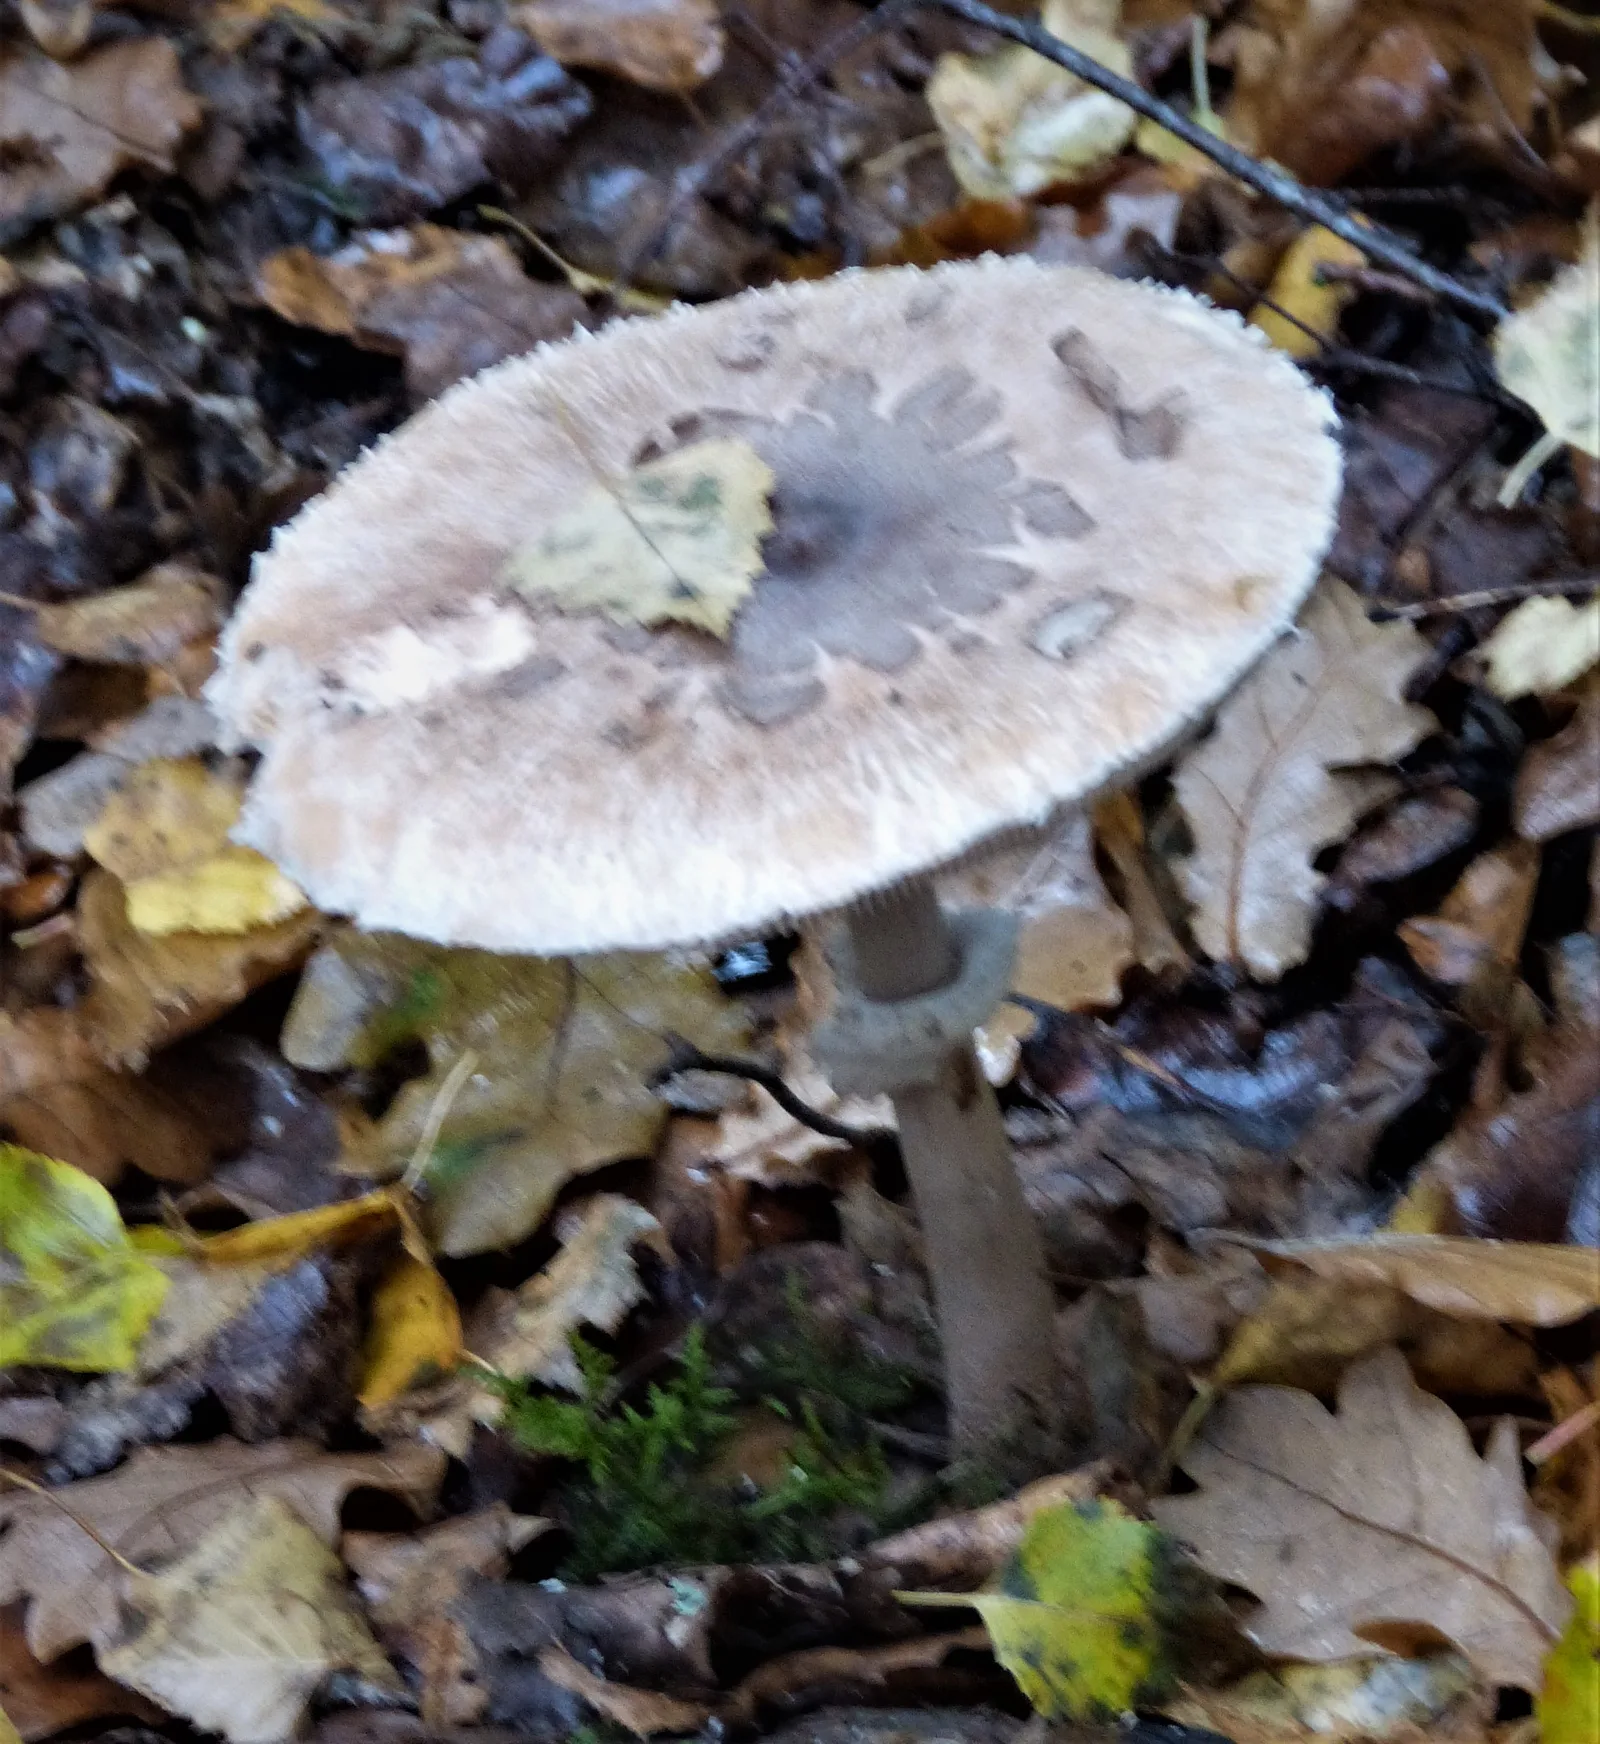
The star parasol is a striking gilled mushroom whose hallmark is the cracking cuticle of the cap, forming a characteristic star-like pattern around the darker center. It grows on a slender stem with a movable ring and a bulbous base. Although in the field it catches the eye with its contrasting pattern, its precise distinction from related parasols requires considering many anatomical features, not just the pattern on the cap itself.
Identification, habitat, and key differences.
Forager
Fruitbody structure
- Fruit body form
- Fruit body form: Cap.
Fruit body form: stipe.
Cap
- Cap shape
- Cap shape: hemispherical.
Cap shape: convex.
in young fruit bodies: Cap shape: ovoid or bell-shaped.
Cap shape: conical.
Cap shape: flat. - Cap covering
- Cap covering: scaly (in patches, brownish-grey covering).
Cap covering: scaly (smooth covering surface). - Cap colour
- Cap colour: whitish (background colour).
Cap colour: white (background colour).
Cap colour: cream (background colour). - Margin covering
- Margin covering: glabrous.
Margin covering: scaly. - Veil remnants on the margin
- Veil remnants on the margin: with veil remnants.
- Cap diameter
- The cap measures 50–120 mm in diameter.
- Cap centre
- Cap centre: with a distinct umbo.
Underside of the cap
- Hymenophore type
- Hymenophore type: gills.
Gills at stipe
- Hymenophore attachment to the stipe
- Hymenophore attachment to the stipe: free from the stipe (gills).
- Hymenophore colour
- Hymenophore colour: white.
Hymenophore colour: cream. - Gill spacing
- Gill spacing: crowded.
Stem and base
- Stipe shape
- Stipe shape: cylindrical.
- Stipe base
- Stipe base: bulbous.
- Stipe colour
- Stipe colour: whitish or brownish.
- Stipe surface covering
- Stipe surface covering: scaly.
Stipe surface covering: fibrillose or scaly. - Stem surface pattern
- Stem surface pattern: zigzag.
- Stipe length
- Stipe length: 60–150 mm.
- Stipe diameter
- Stipe diameter: 6–15 mm.
Ring
- Ring presence
- Ring presence: present (ring count: 1, simple in structure).
- Ring colour
- Ring colour: brownish (underside of the ring).
- Ring surface covering
- Ring surface covering: floccose (ring margin).
- Ring mobility
- Ring mobility: movable.
Bulb
- Width of the basal stipe bulb
- Width of the basal stipe bulb: up to 25 mm.
Flesh
- Flesh colour
- Flesh colour: whitish.
- Flesh structure
- Flesh structure: fibrous.
Where and when it grows
- Fruit body growth pattern
- Fruit body growth pattern: solitary or in groups.
- Fruiting season
- Fruit bodies appear from June to November.
- Distribution area
- Potwierdzono występowanie w Polsce.
Edibility and culinary use
- Edibility
- Edible
Law
- Protection
- It is not subject to species protection in Poland.
- Trade
- It is approved in Poland for neither trade nor the production of mushroom products.
What it can be confused with
Macrolepiota procera
Key differences
The parasol mushroom (Macrolepiota procera) usually forms distinctly larger fruit bodies. Its cap is covered with protruding, felty scales, and the mature stipe features a much more prominent, transverse, zigzag pattern.
Macrolepiota excoriata
Key differences
The frayed parasol (Macrolepiota excoriata) differs from the star parasol in having a distinctly paler cap and a smooth stipe surface that lacks fine brownish scales.
Macrolepiota mastoidea
Key differences
The slender parasol (Macrolepiota mastoidea) produces finer and more densely distributed scales on its cap and more frequently grows in open, grassy habitats. In the international Species Fungorum registry, the name M. konradii is considered a synonym of M. mastoidea, whereas in many regional field guides the two taxa are described separately.
The star parasol (Macrolepiota konradii) is distinguished by larger, more sparsely distributed scales on the cap that crack into a characteristic star-like pattern, distinct from the fine scaling of the slender parasol. Although it is included by some authors in the broad Macrolepiota mastoidea complex, in field taxonomy it represents a separate taxon.
FAQ
Where did the name of the star parasol come from?
It comes from the characteristic cracking of the cuticle on the cap, which radiates around the darker center in a shape resembling the arms of a star.
Is the star parasol an edible mushroom?
In field guides it is considered edible, but due to the high risk of confusion with deadly poisonous amanitas or dapperlings, its foraging is discouraged for amateurs.
How does it differ from the parasol mushroom?
It is usually smaller and more delicate, and its cap cracks into larger, star-arranged patches, in contrast to the finer scales of the parasol mushroom.
Does the presence of nearby trees mean it forms mycorrhiza with them?
No. The proximity of trees does not indicate mycorrhiza – this species is a saprotroph and derives nutrients from decomposing litter and humus.
In which months can it be found in nature?
Fruit bodies appear during the season from summer to autumn, usually from July or August to October, depending on litter moisture and temperature.
In which environments does it most often grow?
It is found in deciduous, coniferous, and mixed forests, on forest edges, forest clearings, in thickets, and in wooded parks.
Does the star-like pattern on the cap alone provide certainty of identification?
No. The morphological variability of parasols is high, and reliable identification requires evaluating all features: stem, ring, gills, and microscopy.
What is the relationship between M. konradii and M. mastoidea?
In regional approaches they are sometimes treated separately, but in many modern taxonomic sources M. konradii is considered a variety or synonym of M. mastoidea.
Which parts of the fruit body are suitable for possible consumption?
Only the caps after thorough heat treatment. The stems are tough, woody, and indigestible, which is why they are always discarded.
What does the ring on the stem of the star parasol look like?
It is distinct, membranous, and movable – it can be gently shifted up and down the stem without tearing it from the fruit body.
Enthusiast
Names and history
- Obowiązująca nazwa krajowa
- Czubajka gwiaździsta
- Obowiązująca nazwa taksonomiczna
- Macrolepiota konradii
Home observations
Spore print
- Required materials
- fresh, mature cap, sheet of paper, glass or small bowl, water
- Time
- 2–24 h
- Procedure
- Place the cap underside down on the paper.
- Add a drop of water on top and cover.
- After 2–24 hours, lift the cap and examine the deposit.
What to look for
- Spore print colour
- Spore print colour: white.
Under the microscope
- Required materials
- light microscope, microscope slide and cover slip, needle, water, spores from print
- Procedure
- Transfer a small amount of the spore print onto the slide using a needle.
- Add a drop of water, cover with a cover slip, and examine the spores.
What to look for
- Spore shape
- Spore shape: ellipsoid. Spore shape: ovoid.
- Spore dimensions
- Length 11.5–17.2 µm, width 8–10.9 µm.
- Spore dimensions
- Length 14.4 µm, width 9.6 µm.
- Spore dimensions
- Length 14.3 µm, width 9.6 µm.
Compare dimensions after calibrating the microscope scale.
Non-culinary uses
From a culinary perspective, only the caps are used, as the stems are too tough, stringy, and fibrous. After thorough cleaning, they are most often prepared breaded or fried in butter, similarly to other larger parasols. This mushroom has no documented medicinal or industrial uses, and its significance is limited to occasional amateur foraging and an aesthetic role in nature photography.
History and culture
The species was named in honor of the Swiss mycologist Paul Konrad. In European literature, its taxonomic position has long sparked debate – in regional field guides it is sometimes distinguished as a separate taxon, while some modern registries and authors consider it a form or synonym of the slender parasol (Macrolepiota mastoidea). Due to these nomenclatural complexities, this mushroom has not developed deeper, independent folk traditions.
Edibility and safety
In the literature, it is sometimes treated as an edible mushroom, valued similarly to the parasol mushroom, but its collection involves significant risk. The presence of gills, a ring, and a bulbous stem base are characteristics shared with deadly poisonous amanitas, and smaller fruit bodies are easily confused with dangerous dapperlings. Under-fried caps can cause gastrointestinal complaints, which is why people without specialist knowledge should refrain from harvesting it for culinary purposes.
Habitat and occurrence
Fruit bodies are found from summer to autumn in deciduous, coniferous, and mixed forests, as well as in clearings, thickets, and parks. Although it grows in the vicinity of various trees, the presence of beech, oak, or pine does not indicate a mycorrhizal relationship – this fungus is a saprotroph that decomposes organic matter in soil and litter. It usually appears singly or in small groups, preferring places with open plant cover and humus-rich soil.
Researcher
Edibility and culinary use
Ustalenia źródłowe: jadalność, spożycie i wykorzystanie
- Edibility
- Edible
Źródło oznaczenia.
Marek Snowarski, atlas i GRej: Macrolepiota konradii / czubajka gwiaździsta · jadalne czy trujące?: Jadalna [105]. Nie jest to ocena surowych owocników ani wymóg gotowania.
Dosłowna ocena atlasowa jadalności — grzyby.pl i ČMS · Myko.cz / Kuchyňské využití: Je jedlá a chutná podobně jako bedla vysoká, jen trochu méně vydatná. Wtórny dosłowny odczyt.
Scientific names and taxonomy
- Current scientific name
Macrolepiota konradii
Czubajka gwiaździsta jest opisywana pod nazwą naukową Macrolepiota konradii (Huijsman ex P.D.Orton) M.M.Moser. Według Index Fungorum kombinację tę opublikował Moser w 1967 r. na stronie 185 trzeciego wydania Kleine Kryptogamenflora (tom 2b/2). Basionim Lepiota konradii został opublikowany w 1960 r. Przynależność do rodziny pieczarkowatych (Agaricaceae) potwierdzają Index Fungorum, czeski atlas mykologiczny oraz baza NCBI.
Zakres ujęcia tego taksonu różni się w zależności od bazy danych. W rekordzie Index Fungorum 317072 jako aktualna nazwa (Species Fungorum current name) figuruje Macrolepiota mastoidea (Fr.) Singer (1951). Z kolei baza NCBI prowadzi Macrolepiota konradii jako odrębny gatunek (taxid 90954), a polskie i czeskie atlasy traktują go w osobnych opracowaniach. Klasyfikacja NCBI nie stanowi jednak niezależnego autorytetu nomenklatorycznego, a same rozbieżności w bazach nie pozwalają na automatyczne utożsamienie wszystkich dawnych zbiorów, zdjęć i szczepów.
W historii taksonomii grzyb ten funkcjonował pod nazwami Lepiota konradii, Lepiota excoriata var. konradii oraz Macrolepiota procera var. konradii, które baza NCBI traktuje jako relacje homotypowe lub basionim. Dawne ujęcie w randze odmiany nie oznacza jednak, że każdy okaz oznaczony jako konradii mieści się we współczesnym ujęciu Macrolepiota procera. Atlas czeski przytacza również Macrolepiota gracilenta (Krombh.) Wasser; w rewizji de Koka i Vellingi z 1998 r. taksony M. gracilenta i M. rickenii włączono do kompleksu M. mastoidea.
W analizie filogenetycznej Ge, Yanga i Vellingi z 2010 r. sekwencje oznaczone jako Macrolepiota konradii trafiły do kladu /macrosporae obok M. mastoidea, M. excoriata, M. orientiexcoriata, M. phaeodisca, M. psammophila oraz M. subsquarrosa. Cały klad uzyskał maksymalne poparcie statystyczne (100% bootstrap, PP 1,00). Wysokie poparcie tej grupy potwierdza bliskie pokrewieństwo gatunków, lecz samo w sobie nie rozstrzyga o ich odrębności ani o synonimice.
Taxon scope and identification limitations
Prawidłowe oznaczenie czubajki gwiaździstej wymaga łącznej oceny cech makroskopowych i mikroskopowych: układu płatów na kapeluszu, faktury trzonu, budowy i ruchomości pierścienia, wykształcenia blaszek, bulwy u nasady oraz parametrów zarodników. Sam „gwiaździsty” wzór pęknięć na kapeluszu nie wystarcza do pewnej identyfikacji taksonu.
- Zakres ujęcia taksonomicznego
Osobny wpis katalogowy 45 dla czubajki gwiaździstej, pod źródłową nazwą Macrolepiota konradii. Równorzędny z wpisem 44 w katalogowej grupie Macrolepiota mastoidea. GBIF ujmuje nazwę jako synonim; Blanco-Dios 2016 publikuje M. mastoidea var. konradii. Zachowano odrębne zakresy źródeł, okazów i szczepów. Historyczne błędne użycie konradii dla rhodosperma nie uzasadnia automatycznego łączenia danych. Członkostwo w grupie nie rozstrzyga formalnej rangi.
[1] [21]
Names and classification history
Karta České mykologické společnosti: Karta Czeskiego Towarzystwa Mykologicznego przedstawia takson pod nazwą Macrolepiota konradii i podaje jego synonimy.
de Kok i Vellinga (1998): Artykuł podaje, że M. konradii była rzadka w Holandii i opisuje historyczne, błędne użycie nazwy Lepiota excoriata subsp. mastoidea dla tego taksonu; nie wskazuje odrębnego eksykatu.
Ge i in. (2010): W artykule M. konradii występuje w drzewie filogenetycznym jako sekwencje z Holandii; nie należy do sześciu gatunków opisanych z materiału chińskiego.
Index Fungorum 317072: Rekord podaje kombinację M. konradii, basionym Lepiota konradii oraz powiązane pole bieżącej nazwy w Species Fungorum.
Publikacje Łopusiewicza i współautorów (2015–2016): Trzy zachowane rekordy publikacji wskazują M. konradii jako nazwę materiału badawczego. Jest to użycie nazwy w pracach o ekstraktach, nie rewizja taksonomiczna.
NCBI Taxonomy 90954: Rekord NCBI zachowuje nazwę M. konradii i listę synonimów; sam wskazuje, że nie jest autorytetem nomenklatorycznym.
Atlas Marka Snowarskiego: Pełna karta atlasowa używa nazwy Macrolepiota konradii i polskiej nazwy czubajka gwiaździsta.
Blanco-Dios (2016): Artykuł publikuje Macrolepiota mastoidea var. konradii, MycoBank MB818011, z basionym Lepiota konradii Huijsman ex P.D. Orton (1960).
Friebes (2013): Autor odróżnia pierwotne M. konradii sensu Orton od użycia tej nazwy przez Breitenbach i Kränzlin dla M. rhodosperma.
[11] [12] [16] [17] [18] [19] [9] [20] [21] [10] [15]Ecology and distribution
Laboratory diagnostics
Dane ustrukturyzowane
Spores
- Mean spore length-to-width ratio
- Mean spore length-to-width ratio: 1.5 (mean). [21] [8]
Mean spore length-to-width ratio: 1.5 (mean). [21] [8] - Spore length
- Spore length: 13–17 µm. [5]
Spore length: 11.9–17.2 µm. [6]
Spore length: 11.5–16.2 µm. [7]
Spore length: 14.3 µm (mean). [7]
Spore length: 14.4 µm (mean). [6] - Spore length-to-width ratio
- Spore length-to-width ratio: 1.3–1.7. [6]
Spore length-to-width ratio: 1.3–1.7. [7] - Dextrinoid reaction of spores
- Dextrinoid reaction of spores: dextrinoid. [5]
Material and research methods
Microscopic data — source and limitations
Materiał: Źródłowa próba mikroskopowa GRej 375033, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]Materiał: Źródłowa próba mikroskopowa GRej 374428, rewizja 23 VIII 2025; nie średnia populacji gatunku
Zakres odczytu: Udokumentowana obserwacja.
[21]- Results as recorded in the sources — Spore length
- Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 13–17 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,9–17,2 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,3 mikrometra. [7]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia długość zarodnika w badanym materiale wynosi 14,4 mikrometra. [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 11,5–16,2 µm [7] - Results as recorded in the sources — Spore length-to-width ratio
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 1,3–1,7 [7] - Results as recorded in the sources — Spore width
- Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,5 µm [6]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [7]
Materiał badania: GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. 8,3–10,9 µm [7]
Materiał badania: Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału. 8–10 µm [5]
Materiał badania: GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025. Średnia szerokość zarodnika w badanym materiale wynosi 9,6 mikrometra. [6]
Metody i zapisy źródłowe — Opis zarodników w atlasie ČMS; nie podano lokalizacji ani identyfikatora materiału.
Długość zarodnika; Szerokość zarodnika — zapis źródłowy: „13–17 × 8–10 µm” [5]
Reakcja dekstrynoidalna zarodników — zapis źródłowy: „Dekstrynoidalne, czerwonobrązowe w Melzerze.” [5]
Kształt zarodnika — zapis źródłowy: „Eliptyczne lub jajowate.” [5]
Metody i zapisy źródłowe — GRej 374428, BGF0017129, zbiór 4 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017129.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 374428: 11,9–16,8 –17,2! × 8,3–10,5 µm; średnio 14,4 × 9,6 µm!; Q 1,3–1,7, średnio 1,5!” [6]
Metody i zapisy źródłowe — GRej 375033, BGF0017123, zbiór 18 XI 2023; leg./det. Grażyna Domian, rev. Błażej Gierczyk 23 VIII 2025.
Numer okazu: BGF0017123.
Długość zarodnika; Iloraz długości i szerokości zarodnika; Szerokość zarodnika — zapis źródłowy: „GRej 375033: 11,5–16,2 × 8,3–10,9 µm; średnio 14,3 × 9,6 µm; Q 1,3–1,7, średnio 1,5” [7]
Comparisons, characters and source material
Česká mykologická společnost: Karta opisuje cechy M. konradii i możliwe pomyłki. Dwa numery Nálezy wskazują wpisy z kraju środkowoczeskiego; karta nie podaje dla nich numeru zielnikowego.
de Kok i Vellinga (1998): Pełny artykuł wskazuje historyczne błędne użycie nazwy przy omawianiu M. mastoidea; po przeszukaniu wszystkich stron nie przedstawiono odrębnego opisu diagnostycznego ani oznaczonego eksykatu M. konradii.
Ge i in. (2010): Autorzy uwzględniają M. konradii w analizie filogenetycznej, ale opisują morfologicznie sześć innych gatunków z Chin; trzy holenderskie sekwencje mają odrębne pochodzenie od materiału chińskiego opisanego w części metodycznej.
Łopusiewicz (2016), próba nasion: Szczep pochodził z owocnika zebranego we wrześniu 2013 r. w lesie mieszanym koło Kobylanki. Tkankę trzonu przeniesiono na PDA; hodowlę płynną prowadzono trzy tygodnie w 25 °C przy 150 obr./min. W teście kukurydzy i fasoli układano po 10 nasion na krążku bibuły, dodając 5 ml ekstraktu chloroformowo-acetonowego o stężeniu 10, 50 lub 100 mg/ml; kontrola otrzymywała wodę. Długość korzeni oceniano w dniach 3, 4, 5 i 8.
Łopusiewicz i Lisiecki (2015): Zachowany wtórny zapis wskazuje Kobylankę, wrzesień 2013 r. i szczep izolowany z trzonu; numer zielnikowy, potwierdzenie DNA i liczba niezależnych kultur nie zostały podane.
Atlas i wpisy GRej Marka Snowarskiego: Atlas zawiera opis, porównania i 26 wpisów GRej. Wzmianki o roślinach rosnących w pobliżu opisują kontekst miejsca, nie potwierdzają gospodarza mikoryzowego.
Blanco-Dios (2016): Na stronie 27 cechy trzonu i cebulowatej podstawy M. konradii są przedstawione jako wcześniejsze doniesienia cytowanych autorów; nie są nową obserwacją vouchera.
Friebes (2013): Klucz na stronie 21 opisuje pierwotne M. konradii jako takson o ciemnych, grubych łuskach kapelusza i wyraźnym garbku; użycie nazwy dla M. rhodosperma pozostaje oddzielne.
Okaz BGF0017129: Zapis badania łączy GRej 374428 z eksykatem BGF0017129, zbiorem 4 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Okaz BGF0017123: Zapis badania łączy GRej 375033 z eksykatem BGF0017123, zbiorem 18 XI 2023 r. i rewizją oznaczenia 23 VIII 2025 r.; przygotowanie preparatu i liczba pomiarów nie zostały podane.
Łopusiewicz i Mizielińska (2016), powłoki PLA: Badano szczep czubajki z okolic Kobylanki oraz bakterie E. coli DSMZ 1576, S. aureus DSMZ 346, M. luteus DSMZ 20729 i B. atrophaeus DSMZ 675. Filtrat hodowli ekstrahowano mieszaniną chloroformu, acetonu i octanu etylu 3:2:1. Porównano czystą folię PLA, folię z 10% etylocelulozą oraz powłokę zawierającą ekstrakt. Warstwę 100 µm suszono 20 minut w 45 °C; ocenę wykonano według ASTM E 2180-01 i metodą dyfuzyjno-krążkową.
[11] [12] [16] [18] [19] [21] [10] [15] [6] [7] [9]Occurrence verification — scope and limitations
Materiał: Dwa wpisy atlasowe 0066-2024-0264 i 0066-2019-0200 ze Středočeskiego kraju, odpowiednio z 10 października 2024 r. i 20 października 2019 r.
Zakres odczytu: Pełny tekst.
Data przeglądu: 27.10.2026.
[11]Scope of the review
Before completion, the record requires completion or settlement.
- The recorded source information is awaiting a decision.
- Information found in the new sources during the review still needs to be checked and resolved.
Information awaiting a decision: 12
Legal basis and scope of assessment
Regulations for location: Poland
Key substances and their effects
Badania biochemiczne dotyczyły wyciągów uzyskanych z płynu pohodowlanego grzybni oznaczonej jako Macrolepiota konradii. Pomiary te charakteryzują mieszaniny metabolitów wydzielanych do podłoża i nie określają całościowego składu chemicznego owocników rosnących w naturze.
W pracy Łopusiewicza i Lisieckiego (2015) grzybnię wyizolowano z tkanki trzonu owocników zebranych w Kobylance we wrześniu 2013 r. Pierwotną izolację prowadzono na agarze glukozowo-ziemniaczanym (PDA) z dodatkiem 50 mg/l chloramfenikolu w temperaturze 25 °C. Po oczyszczeniu kultury przechowywano w 4 °C, a przed zaszczepieniem hodowli płynnej pasażowano na podłoże PDA bez antybiotyku.
Podłoże płynne w badaniu z 2015 r. zawierało w 1 l wody: 20 g glukozy, 10 g peptonu, 10 g ekstraktu drożdżowego, 0,5 g MgSO₄·7H₂O oraz 1 g K₂HPO₄. Do kolb o pojemności 500 ml wlewano 250 ml pożywki i szczepiono fragmentem agaru PDA z grzybnią o wymiarach 1 × 1 cm. Hodowlę prowadzono przez 21 dni w temperaturze 25 °C na wytrząsarce IKA KS 4000 przy 150 obr./min. Kontrolę stanowiła sterylna pożywka bez grzybni.
Płyn pohodowlany sączono przez filtr o porach 0,2 µm. Do 25 ml filtratu dodawano 25 ml mieszaniny chloroformu, acetonu i octanu etylu w stosunku 3:2:1 (v/v), mieszano przez godzinę przy 300 obr./min, po czym rozdzielano warstwy (określone przez autorów jako dolna warstwa octanowo-etylowa i górna chloroformowo-acetonowa). Rozpuszczalniki odparowywano w 60 °C do zaniku zapachu, a suchy ekstrakt rozpuszczano w 1% roztworze DMSO do stężenia 200 mg/ml (mieszanie przez 30 min przy 100 obr./min w temperaturze pokojowej).
W teście dyfuzyjno-studzienkowym z 2015 r. stosowano płytki Petriego 90 mm z 20 ml agaru Mueller–Hinton oraz 200 µl inokulum bakteryjnego o gęstości 5 w skali McFarlanda. Do trzech studzienek o średnicy 8 mm wprowadzano po 150 µl ekstraktu o stężeniu 200 mg/ml. Płytki poddawano 2-godzinnej predyfuzji w 4 °C, po czym inkubowano przez 24 h w 37 °C. Jako kontrolę negatywną stosowano ekstrakt ze sterylnej pożywki, a jako kontrolę dodatnią – chloramfenikol o stężeniu 0,05 mg/ml.
W próbie dyfuzyjnej ekstrakt o stężeniu 200 mg/ml wytworzył następujące strefy zahamowania wzrostu bakterii:
- Escherichia coli (DSMZ 1576): 16 mm,
- Staphylococcus aureus (DSMZ 346): 17 mm,
- Staphylococcus epidermidis (CBIMO): 18 mm,
- Micrococcus luteus (DSMZ 20729): 36 mm,
- Bacillus cereus (CBIMO): 0 mm,
- Bacillus athrophaeus (DSMZ 675 IZT): 0 mm.
W tym samym badaniu przetestowano sześć gatunków grzybów mikroskopowych: Aspergillus clavatus, Aspergillus niger, Botrytis cinerea, Mucor sp., Penicillium chrysogenum oraz Rhizopus sp. Na podłożu Sabourauda z inokulum zarodników (100 µl zawiesiny w soli fizjologicznej z 0,1% Tween 80), po naniesieniu po 150 µl ekstraktu do studzienek i inkubacji przez 48 h w 25 °C (z 2-godzinną predyfuzją w 4 °C), nie stwierdzono żadnych stref zahamowania wzrostu testowanych grzybów.
W teście przeżywalności bakterii w bulionie Mueller–Hinton ekstrakt (200 mg/ml) dozowano w objętościach od 2,5 do 375 µl (odpowiednio 2,5, 25, 50, 125, 175, 250, 300 i 375 µl). Po odparowaniu rozpuszczalnika w 50 °C dodawano 450 µl bulionu oraz 50 µl zawiesiny bakteryjnej o gęstości 0,5 McFarlanda (ok. 1,5 × 10⁸ CFU/ml). Po 24 h inkubacji w 37 °C wykonywano seryjne rozcieńczenia (10⁻¹–10⁻⁹ w 0,9% NaCl) i posiewano po 100 µl w trzech powtórzeniach na płytki 55 mm, inkubując kolejne 24 h w 37 °C. W metodyce wymieniono stężenia 1–150 mg/ml, a w tabeli wyników ujęto dodatkowo stężenie 170 mg/ml.
Liczba jednostek tworzących kolonie (CFU/ml) po inkubacji z ekstraktem w badaniu z 2015 r.:
- 0 mg/ml (kontrola): E. coli 200 000 000 CFU/ml; S. aureus 175 000 000 CFU/ml,
- 1 mg/ml: E. coli 129 000 000 CFU/ml; S. aureus 145 000 000 CFU/ml,
- 10 mg/ml: E. coli 124 000 000 CFU/ml; S. aureus 128 000 000 CFU/ml,
- 20 mg/ml: E. coli 71 000 000 CFU/ml; S. aureus 1 800 000 CFU/ml,
- 50 mg/ml: E. coli 16 600 CFU/ml; S. aureus 240 000 CFU/ml,
- 70 mg/ml: E. coli 13 200 CFU/ml; S. aureus 91 000 CFU/ml,
- 100 mg/ml: E. coli 9 500 CFU/ml; S. aureus 11 500 CFU/ml,
- 120 mg/ml: E. coli 7 100 CFU/ml; S. aureus 9 600 CFU/ml,
- 150 mg/ml: E. coli 6 400 CFU/ml; S. aureus 6 500 CFU/ml,
- 170 mg/ml: E. coli 5 500 CFU/ml; S. aureus 4 000 CFU/ml.
W podsumowaniu badania autorzy określili spadek liczby żywych bakterii jako redukcję o około pięć rzędów wielkości (przy 150 mg/ml dla E. coli i 120 mg/ml dla S. aureus). Dokładne wyliczenie logarytmiczne ze stężeń w tabeli daje spadek o 4,49 rzędu wielkości dla E. coli oraz 4,26 dla S. aureus.
Wydajność suchego ekstraktu pohodowlanego podana przez badaczy wyniosła 25,25 g/l. W doświadczeniu masa krystalizatora wzrosła z 78,26 g do 82,15 g (przyrost o 3,89 g) po odparowaniu 154 ml ekstraktu.
W pracy Łopusiewicza z 2016 r. badano właściwości fitotoksyczne frakcji chloroformowo-acetonowej z hodowli płynnej szczepu z Kobylanki (hodowla 21 dni w 25 °C przy 150 obr./min, pożywka o tożsamym składzie soli, peptonu, glukozy i ekstraktu drożdżowego, ekstrakcja w układzie 3:2:1 i odparowanie w 60 °C). Roztwór podstawowy przygotowano w 1% DMSO w stężeniu 200 mg/ml.
Test fitotoksyczności przeprowadzono na nasionach fasoli zwyczajnej (Phaseolus vulgaris) oraz kukurydzy (Zea mays) firmy Semas. Nasiona odkażano w 50 ml 50% etanolu przez 1 min, trzykrotnie płukano sterylną wodą i wykładano na bibułę w szklanych płytkach Petriego po 10 sztuk. Podawano po 5 ml ekstraktu o stężeniu 10, 50 lub 100 mg/ml, a próba kontrolna otrzymywała 5 ml sterylnej wody destylowanej. Inkubację prowadzono w temperaturze pokojowej, mierząc długość korzeni w 3, 4, 5 i 8 dniu.
W 8. dniu testu zanotowano następujące skrócenie średniej długości korzeni siewek w porównaniu z kontrolą wodną:
- kukurydza przy 10 mg/ml: 55,06%,
- kukurydza przy 50 mg/ml: 63,39%,
- kukurydza przy 100 mg/ml: 91,07%,
- fasola przy 10 mg/ml: 20,00%,
- fasola przy 50 mg/ml: 46,95%,
- fasola przy 100 mg/ml: 94,61%.
Średnia długość korzeni siewek kukurydzy w poszczególnych dniach pomiaru kształtowała się następująco:
- kontrola (0 mg/ml): dzień 3 – 6,5 mm; dzień 4 – 13,1 mm; dzień 5 – 20,6 mm; dzień 8 – 33,6 mm,
- ekstrakt 10 mg/ml: dzień 3 – 2,1 mm; dzień 4 – 4,6 mm; dzień 5 – 10,2 mm; dzień 8 – 15,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 0,4 mm; dzień 4 – 3,4 mm; dzień 5 – 9,3 mm; dzień 8 – 12,3 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 0,0 mm; dzień 5 – 0,3 mm; dzień 8 – 3,0 mm.
Średnia długość korzeni siewek fasoli w poszczególnych dniach pomiaru wynosiła:
- kontrola (0 mg/ml): dzień 3 – 6,25 mm; dzień 4 – 21,0 mm; dzień 5 – 28,5 mm; dzień 8 – 35,25 mm,
- ekstrakt 10 mg/ml: dzień 3 – 6,9 mm; dzień 4 – 15,4 mm; dzień 5 – 21,3 mm; dzień 8 – 28,2 mm,
- ekstrakt 50 mg/ml: dzień 3 – 1,3 mm; dzień 4 – 9,0 mm; dzień 5 – 16,4 mm; dzień 8 – 18,7 mm,
- ekstrakt 100 mg/ml: dzień 3 – 0,0 mm; dzień 4 – 1,5 mm; dzień 5 – 1,7 mm; dzień 8 – 1,9 mm.
Przy najwyższym stężeniu ekstraktu (100 mg/ml) kiełkowanie było wyraźnie opóźnione – pierwsze kiełkujące nasiona fasoli zaobserwowano dopiero w 4. dniu, a kukurydzy w 5. dniu testu. Podana przez autora wartość redukcji wzrostu korzeni kukurydzy dla 10 mg/ml wyniosła 55,06% (wyliczenie z zaokrąglonych wartości bezwzględnych 15,2 mm względem 33,6 mm daje 54,76%).
Łopusiewicz i Mizielińska (2016) zbadali aktywność ekstraktów z Macrolepiota konradii oraz ich powłok na folii PLA. Sam ekstrakt chloroformowo-acetonowy hamował M. luteus, S. aureus i E. coli (nie działał na B. atrophaeus). Jednak w testach powłok etylocelulozowych na PLA (wobec E. coli i S. aureus) dodatek ekstraktu dał znikomy efekt w porównaniu z samą etylocelulozą; autorzy uznali, że ekstrakt nie tworzy aktywnej powłoki przeciwbakteryjnej.
[9]Analytical results
Source results and their limitations
Drzewo filogenetyczne Ge i in. (2010): Pełne drzewo pokazuje sekwencje AY243603, AY243602 i AY243601 jako M. konradii z Holandii; są nieoznaczone gwiazdką, więc nie zostały wygenerowane w tej pracy.
Zachowane wtórne zestawienie z 2015 r.: W zachowanym wtórnym zestawieniu tabela 1 podaje sześć średnic stref w milimetrach; odchylenia standardowe i liczba powtórzeń nie zostały podane.
Ekstrakt i powłoki PLA — Łopusiewicz i Mizielińska (2016): Przy stężeniu ekstraktu 200 mg/ml tabela 1 podaje strefy zahamowania 16 mm dla E. coli, 17 mm dla S. aureus, 36 mm dla M. luteus i 0 mm dla B. atrophaeus. W porównaniu czystej folii PLA, samej etylocelulozy i powłoki z ekstraktem tabela 3 podaje dla E. coli odpowiednio 787, 11,7 i 6,89 × 10⁶ JTK/ml, a tabela 4 dla S. aureus: 55,4, 3,89 i 1,33 × 10⁵ JTK/ml. Obie tabele zachowują osobne SD. Autorzy opisują nieznacznie większe działanie powłoki z ekstraktem, lecz we wniosku nie uznają uzyskanej powłoki etylocelulozowej za aktywną. Liczby tabel i procenty podane w tekście zachowano jako odrębne wyniki źródła.
Test korzeni kukurydzy i fasoli — Łopusiewicz (2016): W dniu 8 ryciny 2 i 4 podają długość korzeni jako procent kontroli. Dla stężeń 10, 50 i 100 mg/ml są to odpowiednio: kukurydza 44,94%, 36,61% i 8,93%; fasola 80%, 53,05% i 5,39%. To długość pozostała względem kontroli, nie procent redukcji. Dla kukurydzy przy 10 mg/ml rycina 1 podaje jednocześnie 15,2 mm wobec kontroli 33,6 mm, co nie odpowiada dokładnie procentowi z ryciny 2. Obie wartości źródłowe zachowano. Badanie dotyczyło siewek w płytkach, nie skuteczności w terenie.
[16] [19] [9] [18]Ecological studies
Occurrence and habitat
Česká mykologická společnost: Atlas ČMS podaje okres od lipca do listopada i występowanie w ściółce lasów liściastych oraz iglastych. Dwa odrębne zgłoszenia z 10 października 2024 r. i 20 października 2019 r. dotyczą kraju środkowoczeskiego; ogólny opis sezonu nie jest ograniczony do tych stanowisk.
Atlas Marka Snowarskiego: Atlas grzybów Polski dokumentuje występowanie w Polsce i podaje okres od lata do jesieni. Zbiory GRej 374428 i 375033 pochodzą z województwa zachodniopomorskiego, odpowiednio z 4 i 18 listopada 2023 r. Datowane znaleziska nie wyznaczają pełnego sezonu.
Historyczna wzmianka o Holandii: de Kok i Vellinga (1998, s. 69) określają Macrolepiota konradii jako rzadką w Holandii. Jest to historyczna wzmianka krajowa; autorzy nie wskazują tu konkretnego stanowiska, daty zbioru ani vouchera.
[11] [21] [12]Habitat and occurrence
Habitat, area and season
W Czechach gatunek występuje w rozproszeniu od lipca do listopada. Rośnie w ściółce lasów liściastych oraz iglastych, preferując miejsca jaśniejsze i lepiej doświetlone.
W Niderlandach w rewizji de Koka i Vellingi z 1998 r. zarówno Macrolepiota konradii, jak i M. mastoidea zostały określone jako taksony rzadkie.
Potwierdzony zasięg występowania
Wszystkie obszary potwierdzone w zapisanych danych źródłowych.
| Kraj | Regiony i stanowiska | Owocnikowanie | Sources |
|---|---|---|---|
| Czech Republic | Central Bohemian Region | Nie ustalono |
|
| Poland | West Pomeranian Voivodeship | VI–XI |
|
Sources
- GBIF — dokładne dopasowanie Macrolepiota konradii
- Weryfikacja polskich wykazów ochrony i obrotu dla czubajki gwiaździstej
- Atlas ČMS — opis mikroskopowy (także [11])
- GRej 374428 — okaz BGF0017129 (także [7], [21])
- Źródłowa średnia Q — GRej 374428
- Dokumentacja źródłowa badań z 2016 roku: metody i wyniki, czubajka gwiaździsta.
- Blanco-Dios J.B. 2016. Agaricales de las dunas de Galicia (VI): una nueva variedad de Macrolepiota y algunas combinaciones nuevas. Tarrelos 18:27-28.
- de Kok R.P.J., Vellinga E.C. 1998. Notulae ad Floram agaricinam neerlandicam—XXXII.Macrolepiota. Persoonia17(1): 69–79
- Rozporządzenie Ministra Środowiska 9.10.2014; Dz.U. 2014 poz. 1408
- Tekst jednolity rozporządzenia Ministra Zdrowia; Dz.U. 2026 poz. 258
- Friebes G. 2013. Der Tintling 83:19-22.
- Ge Z.W., Yang Z.L., Vellinga E.C. 2010. The genus Macrolepiota(Agaricaceae, Basidiomycota)inChina. FungalDiversity45:81–98. DOI 10.1007/s13225-010-0062-0
- Index Fungorum 317072, Macrolepiota konradii
- Łopusiewicz Ł.2016. Ocena możliwości zastosowania ekstraktu z grzyba Macrolepiota konradii jako naturalnego bioherbicydu
- Łopusiewicz Ł., Lisiecki S. 2015. Analiza właściwości bakteriostatycznych i fungistatycznych grzyba Macrolepiota konradii. Badania i Rozwój Młodych Naukowców wPolsce, Nauki przyrodnicze TomI, CzęśćII, str.79–84
- NCBI Taxonomy90954, Macrolepiota konradii